综述

乳酸菌细菌素的高效表达及其在饲料中的应用

  • 王文岩 ,
  • 李广转 ,
  • 管军军 ,
  • 郭琳娜 , *
展开
  • 河南工业大学生物工程学院, 郑州 450001
*郭琳娜,讲师,硕士生导师,E-mail:

王文岩(2001—),男,河南周口人,硕士研究生,研究方向为功能乳酸菌的开发及在饲料中的利用。E-mail:

Office editor: 陈 燕

收稿日期: 2025-11-28

  网络出版日期: 2026-08-13

基金资助

国家自然科学基金项目(32503286)

河南省科技攻关项目(242102111014)

河南工业大学青年骨干教师培育计划(21421296)

河南工业大学高层次人才科研基金项目(2022BS042)

Efficient Expression of Lactic Acid Bacteria Bacteriocins and Their Application in Feed

  • WANG Wenyan ,
  • LI Guangzhuan ,
  • GUAN Junjun ,
  • GUO Linna , *
Expand
  • College of Bioengineering, Henan University of Technology, Zhengzhou 450001, China
*lecturer, E-mail:

Received date: 2025-11-28

  Online published: 2026-08-13

摘要

乳酸菌细菌素是乳酸菌核糖体产生的多肽或蛋白质,具有抑菌、绿色、安全、高效等特点,可作为替代抗生素的理想选择。细菌素产量低成为了限制其规模化应用的关键。通过有效技术进行产细菌素乳酸菌的菌株改良,可实现高效、稳定的细菌素表达。基于此,本文综述了调控乳酸菌细菌素高效表达的4种措施——培养条件优化、共培养诱导、异源表达及诱变育种,深入比较了各种措施的作用机制与表达效果,并总结了产细菌素乳酸菌及其细菌素在饲料中的应用研究进展。此外,本文对乳酸菌细菌素的规模化生产和未来的发展方向进行了展望,以期为细菌素的高效表达及其在饲料中的应用提供参考。

本文引用格式

王文岩 , 李广转 , 管军军 , 郭琳娜 . 乳酸菌细菌素的高效表达及其在饲料中的应用[J]. 动物营养学报, 2026 , 38(8) : 5671 -5683 . DOI: 10.12418/CJAN2026.455

Abstract

Lactic acid bacteria bacteriocins are peptides or proteins produced by the ribosomes of lactic acid bacteria. They possess characteristics such as bacteriostatic activity, environmental friendliness, safety and high efficiency, making them ideal alternatives to antibiotics. The low yield of bacteriocins has become the key factor limiting their large-scale application. Through effective techniques for strain improvement of bacteriocin-producing lactic acid bacteria, efficient and stable expression of bacteriocins can be achieved. Based on this, this paper reviewed 4 strategies for regulating the efficient expression of lactic acid bacteria bacteriocins: optimization of culture conditions, co-culture induction, heterologous expression and mutation breeding. The mechanisms and expression effects of these strategies were compared in depth. Furthermore, the research progress on the application of bacteriocin-producing lactic acid bacteria and their bacteriocins in feed was summarized. In addition, this paper also proposes prospects for the large-scale production of lactic acid bacteria bacteriocins and future development directions, aiming to provide a reference for the efficient expression of bacteriocins and their application in feed.

在我国养殖业“全面禁抗”背景下,对于饲料行业下游的养殖行业,尤其是规模化养殖场,在动物疫病防控及生长性能维持方面将面临一定程度挑战[1]。益生菌、酶制剂、酸化剂和植物提取物等替代品逐渐成为主力,其中乳酸菌细菌素因其独特的功能特性和安全性备受关注。乳酸菌本身作为常用的发酵菌剂,能够通过竞争性排斥、分泌代谢产物细菌素抑制病原菌生长[2]。细菌素是一类由核糖体合成的具有抑菌活性的多肽或蛋白质,具有高效抑菌、无毒无害、无抗药性、不易残留和稳定性强的特点[3]。乳酸菌细菌素产量低严重限制了其大规模的应用[4]。本文围绕乳酸菌细菌素高效表达调控措施及其在饲料中的应用展开综述,系统探究乳酸菌细菌素表达增效机制及其在饲料中的应用研究进展,这对推动饲料行业绿色转型及创新发展具有重要意义。

1 细菌素分类

细菌素作为微生物的代谢产物,具有抑菌、高效、安全、绿色等特点,主要分为Ⅰ、Ⅱ、Ⅲ、Ⅳ 4类,具体分类及特性见表1
表1 细菌素分类及其特性

Table 1 Classification and characteristics of bacteriocins

类别
Classifications
菌株来源
Strain
sources
分子质量
Molecular
weight/ku
稳定性
Stability
抑菌机制
Antibacterial
mechanism
抑菌特性
Antibacterial
property
参考文献
Reference


Ⅰ类(羊毛硫细菌素)
Class Ⅰ (lantibiotics)
Ⅰa类 乳酸乳球菌

<5


热稳定


破坏细胞膜
完整性
广谱抗菌

[15-16]
Ⅰb类
芽孢杆菌属

革兰氏阳性菌
Ⅰc类


Ⅱ类(非羊毛硫细菌素)
Class Ⅱ (non-
lantibiotic bacteriocin)
Ⅱa类 戊糖片球菌


<10


热稳定


破坏细胞膜
完整性
强抗李斯特菌


[6,17]
Ⅱb类 植物乳杆菌

革兰氏阳性菌
Ⅱc类 乳酸乳球菌
Ⅱd类 屎肠球菌
Ⅲ类(大型热不稳定蛋白)
Class Ⅲ (large thermal
unstable protein)
粪肠球菌 >30 热不稳定 酶解细胞壁 革兰氏阳性菌 [13]
Ⅳ类
Class Ⅳ*
瑞士乳杆
菌、肠膜明
串珠菌
糖酵解敏
感、脂解酶
敏感
干扰糖酵解/
脂质代谢
革兰氏阳性菌 [18]

*含碳水化合物或脂质分子的大型复合物

Large complexes containing carbohydrate or lipid molecules。

1.1 Ⅰ类细菌素

Ⅰ类细菌素是一类经过翻译后修饰的细菌素,修饰作用会影响其结构变化,比如糖基化、杂环化、首尾环化,以及特殊氨基酸如羊毛硫氨酸的引入。因此,Ⅰ类细菌素又称为羊毛硫细菌素[5],该类细菌素分子质量<5 ku,热稳定性好,主要通过破坏细胞膜的完整性抑菌。

1.2 Ⅱ类细菌素

Ⅱ类细菌素具有良好的耐热性,分为4类。其中,Ⅱa类细菌素N端具有高度保守的亲水带电荷区域,包括1个二硫键和1个保守序列“YGVGN”。部分Ⅱa类细菌素的C端也存在二硫键,如片球菌素PA-1(pediocin PA-1)、肠球菌素A(enterocin A)、乳杆菌素G(sakacin G),此二硫键极大地稳定了α螺旋结构,使得细菌素具有更好的耐热性[6]。Ⅱa类细菌素对李斯特菌属具有强烈的抑制作用,同时对沙门氏菌、葡萄球菌、大肠杆菌、丁酸梭菌等也具有抑菌活性,主要通过破坏膜结构等机制发挥抗菌作用[7]
Ⅱb类细菌素又称为双肽细菌素,由2个不同的肽链组成,需要大约相同量的肽链才能达到最佳抑菌活性[8]。其具有优良的热稳定性,通过形成跨膜孔道,导致细胞内单价阳离子[如钾离子(K+)、钠离子(Na+)]泄漏,破坏膜电位和离子平衡。对沙门氏菌、葡萄球菌、单核细胞增生李斯特菌都具有显著的抑制作用[9]
Ⅱc类细菌素是一类环状多肽,相对于其他Ⅱ类细菌素具有更高的生物学活性。此类细菌素可形成4~5个α螺旋,螺旋相互折叠形成疏水中心,这是细菌素与靶细胞膜结合的关键部位[10]。同时,Ⅱc类细菌素具有较为独特的特征,合成时不携带N端的先导肽。通常,该先导肽作为分泌和修饰的识别序列,使细菌素在生产细胞内不具有活性[11]。Ⅱc类细菌素通过在靶细胞膜形成穿孔从而起到杀菌作用。
Ⅱd类细菌素主要为单肽细菌素,不具有前导肽,合成主要涉及4种不同的基因,包括结构基因、免疫基因、编码ATP结合盒转运蛋白(ATP-binding cassette transporter,简称ABC转运蛋白)基因、调控基因。Ⅱd类细菌素主要:1)通过干扰细胞膜的形成、抑制肽聚糖的合成从而达到抑菌效果;2)与特异性膜蛋白结合形成孔洞,使细胞内容物流出导致细胞死亡[12]

1.3 Ⅲ类细菌素

Ⅲ类细菌素通常是热不稳定大分子蛋白,分子质量>30 ku,结构复杂,包含多个肽链和结构域,主要通过水解指示菌细胞壁的肽聚糖实现抑菌[13]

1.4 Ⅳ类细菌素

Ⅳ类细菌素通常被定义为含有碳水化合物或脂质分子的大型复合体,并且为带有正电荷的疏水性大分子,与其他大分子形成大型复合物[14]。然而,脂质或碳水化合物成分的存在也使这些细菌素易受糖解酶或脂解酶的降解,从而影响其稳定性和活性特征。

2 乳酸菌细菌素的抑菌与合成机制

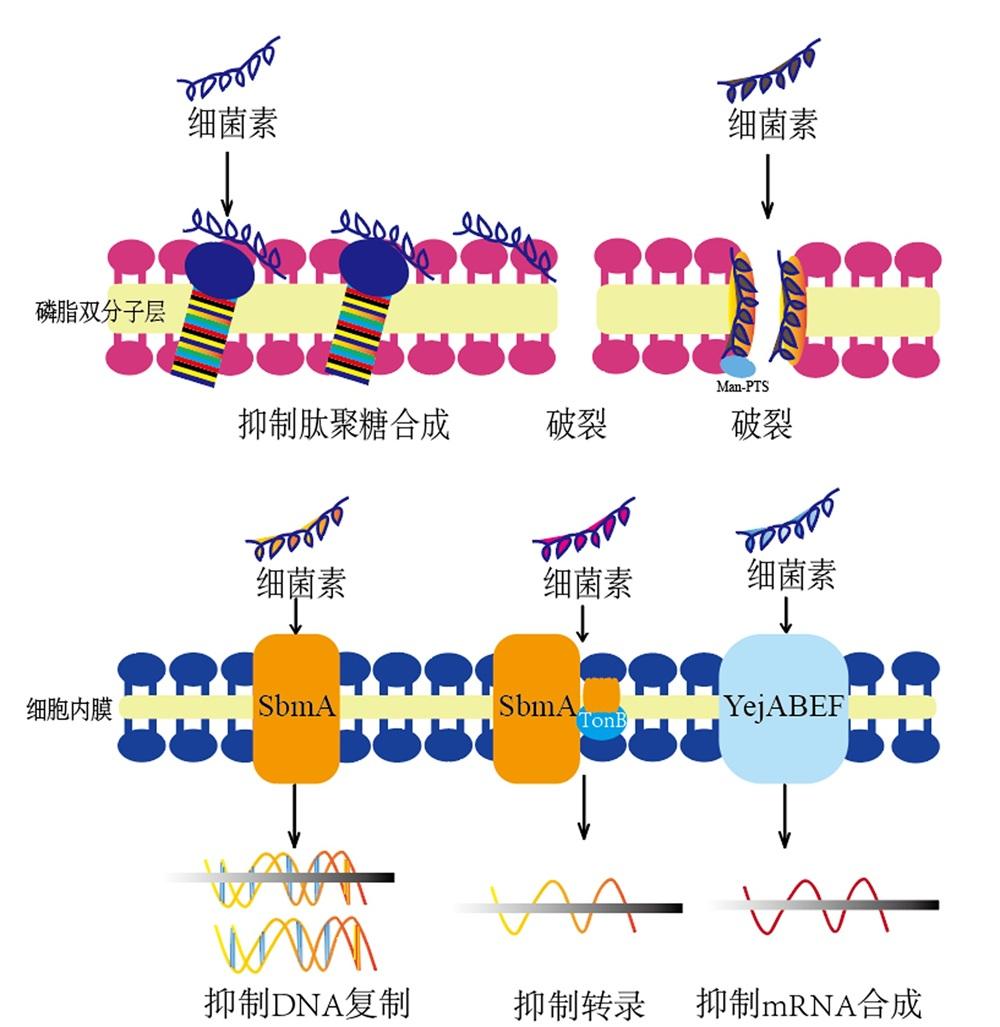
乳酸菌细菌素具有双重抑菌途径:一方面抑制有害菌的肽聚糖合成,结合甘露糖磷酸转移酶系统(mannose phosphotransferase system,Man-PTS)形成孔道;另一方面通过有害菌内膜上的转运蛋白系统来抑制DNA复制、转录及mRNA合成过程。具体抑菌机制见图1
图1 乳酸菌细菌素抑菌机制

Man-PTS:甘露糖磷酸转移酶系统 mannose phosphotransferase system;SbmA:肽类抗生素转运蛋白SbmA peptide antibiotic transporter SbmA;TonB:Ton复合体亚基TonB Ton complex subunit TonB;YejABEF:微菌素C转运蛋白YejABEF microcin C transporter YejABEF。

Fig.1 Antibacterial mechanism of lactic acid bacteria bacteriocins

乳酸菌细菌素合成通常由诱导因子、组氨酸蛋白激酶(histidine protein kinases,HPK)和反应调节蛋白(response regulator,RR)3部分组成群体感应(quorum sensing,QS)系统,当诱导因子达到一定浓度阈值时,才能激活细菌素合成基因的表达,活性细菌素分泌前期,由导肽和核心肽(不具有活性的细菌素)2部分组成,分泌过程需要依赖ABC转运蛋白或Sec依赖途径[19],并且导肽经过特异性蛋白酶切除后,才能成为活性细菌素。对于一些细菌素(Ⅰ类羊毛硫细菌素),在导肽切除后还需要进行复杂的翻译后修饰才能获得完全活性。这种精密的调控机制限制了乳酸菌细菌素的过量生产,导致乳酸菌细菌素的产量较低[20]。因此,通过高效表达策略提升乳酸菌细菌素产量,才能使乳酸菌细菌素的规模化应用成为可能。

3 乳酸菌细菌素高效表达措施

目前,商品化的乳酸菌细菌素仅限于少数几种,合成量低是乳酸菌细菌素应用受限的主要原因之一。高效表达措施包括培养条件优化、共培养诱导、异源表达及诱变育种等。

3.1 培养条件优化

培养条件优化是通过调控培养基组分、pH、温度等条件,提升微生物的代谢活性及其次级代谢产物的合成能力。相关研究表明,葡萄糖与蛋白胨的组合及配比对乳酸菌细菌素产量具有显著影响[21]。细菌素的合成并非简单的营养物质调控,而是一个受菌群密度精密调控的行为[22-23]。在具体的优化实践中,需要对关键参数进行筛选与优化。赵露等[4]以戊糖片球菌(Pediococcus pentosaceus)为研究对象,优化之后的抑菌圈直径较之前提高了19.26%。匡珍等[24]以乳酸乳球菌K6(Lactococcus lactis K6)为研究对象,通过优化培养时间、温度和初始pH,使乳酸链球菌素(nisin)Z的半数抑菌浓度(MIC50)降至0.625 BU/mL,产量提高8倍。Qiao等[25]采用响应面法对屎肠球菌TJUQ1(Enterococcus faecium TJUQ1)活性进行优化,发现牛肉提取物、磷酸氢钾(K2HPO4)和初始pH是对细菌素活性最重要的影响因素,优化后使细菌素活性从460 AU/mL提升至816.87 AU/mL,为优化前的1.78倍,并验证了其在鲜切蔬菜中短期抑制李斯特菌的潜力,但抑菌效果随贮藏时间延长而减弱。曾承露等[26]以棉籽糖乳球菌Y-12(Lactococcus raffinolactis Y-12)为研究对象,通过响应面法优化使金黄色葡萄球菌的抑菌圈直径从14.12 mm提升至16.87 mm,提高19.5%。李轩伊[27]研究证实,乳酸菌混合发酵结合优化培养条件,可以增强其抑菌活性,并证实优化后所产的细菌素经过121 ℃处理20 min后,仍能保持83%抑菌活性;该细菌素对部分酶敏感,在酸性、中性及弱碱性条件下仍具有较高的稳定性,表现出广谱抗菌性,较优化前抑菌活性提高了1.36倍。

3.2 共培养诱导

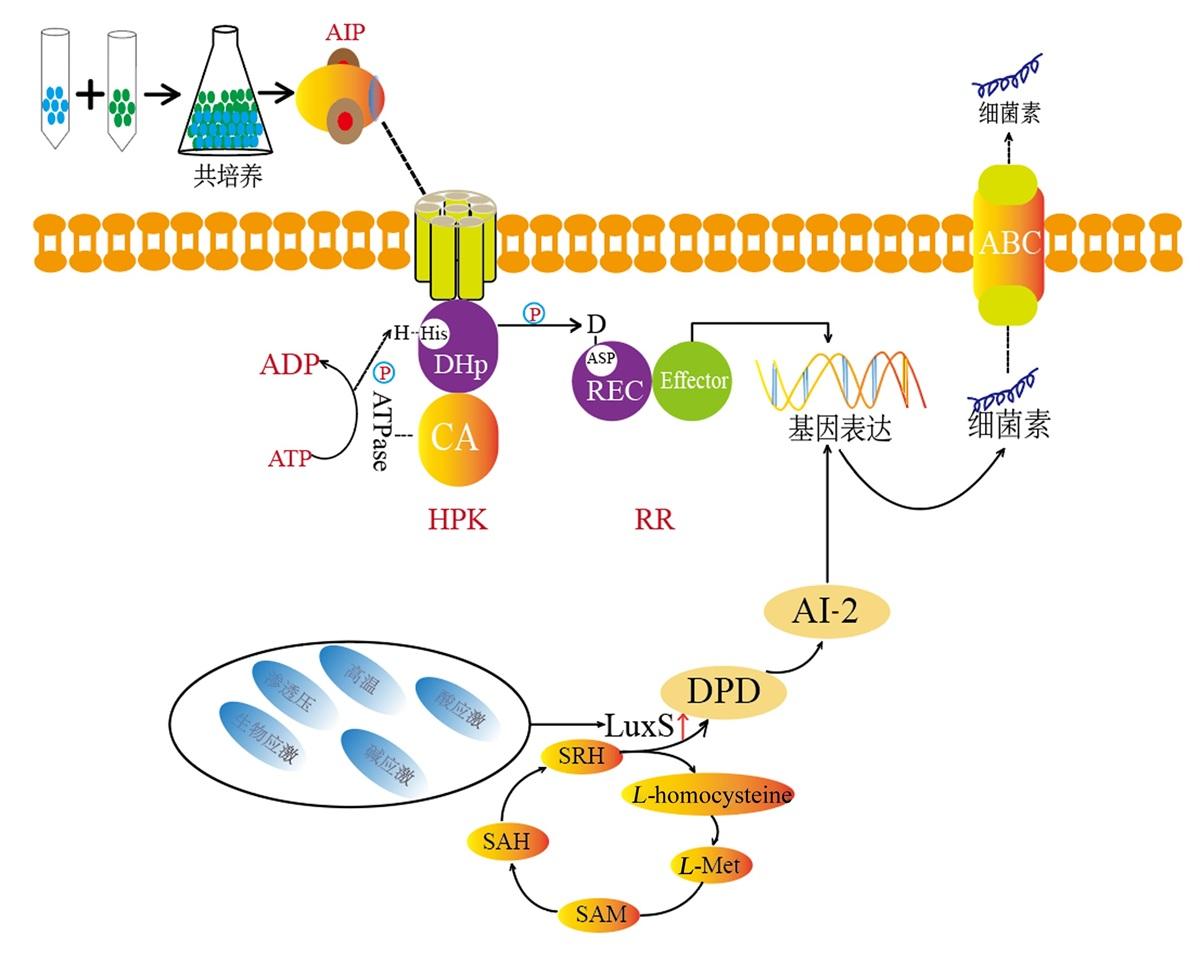
共培养是一种通过信号分子介导的QS系统协调微生物群体行为的措施。细菌素的合成受QS系统调控,当乳酸菌密度达到阈值时,积累的信号分子如自诱导肽(autoinducing peptide,AIP)激活膜上HPK,引发磷酸化级联反应,最终使磷酸化的RR结合细菌素合成基因启动子,激活细菌素合成基因,促进细菌素过量表达。特定外界环境改变会导致S-核糖同型半胱氨酸酶(LuxS)的上调,S-核糖基-L-高半胱氨酸(SRH)通过LuxS酶促进4,5-二羟基-2,3-戊二酮(DPD)和L-高半胱氨酸(L-homocysteine)的产生,后者可重新进入循环;DPD会自发环化形成自诱导物-2(autoinducer-2,AI-2),诱导细菌素基因表达,最后通过ABC转运蛋白释放到胞外。具体的共培养诱导乳酸菌细菌素高效表达机制[28]图2
图2 共培养诱导乳酸菌细菌素高效表达机制

AIP:自诱导肽 autoinducing peptide;ABC:ATP结合盒 ATP-binding cassette;ADP:二磷酸腺苷 adenosine diphosphate;ATP:三磷酸腺苷 adenosine triphosphate;P:磷酸 phosphate;ATPase:腺苷三磷酸酶 adenosine triphosphatase;H-His:组氨酸磷酸化位点 histidine phosphorylation site;DHp:二聚化与组氨酸磷酸转移结构域 dimerization and histidine phosphotransfer domain;CA:催化与ATP结合结构域 catalytic and ATP-binding domain;HPK:组氨酸蛋白激酶 histidine protein kinases;D:天冬氨酸磷酸化位点 aspartate phosphorylation site;ASP:天冬氨酸 aspartic acid;REC:接收结构域 receiver domain;Effector:效应器;RR:反应调节蛋白 response regulator;LuxS:S-核糖同型半胱氨酸酶 S-ribosylhomocysteine lyase;SRH:S-核糖基-L-高半胱氨酸 S-ribosyl-L-homocysteine;SAH:S-腺苷-L-高半胱氨酸 S-adenosyl-L-homocysteine;SAM:S-腺苷-L-甲硫氨酸 S-adenosyl-L-methionine;L-Met:L-甲硫氨酸 L-methionine;L-homocysteine:L-高半胱氨酸;DPD:4,5-二羟基-2,3-戊二酮4,5-dihydroxy-2,3-pentanedione;AI-2:自诱导物-2 autoinducer-2。

Fig.2 Mechanism of efficient expression induced by co-culture in lactic acid bacteria bacteriocins[28]

相关研究表明,共培养中的细胞间信号传递依赖于QS介导的分子通讯机制,该机制广泛存在于微生物群落[29]。产细菌素乳酸菌与其他乳酸菌共培养时,其细菌素合成相关基因表达上调,可显著提高细菌素的产量[30-31]。此外,乳酸菌与枯草芽孢杆菌(Bacillus subtilis)、酵母菌等共培养后也具有更好的抑菌效果。研究表明,将植物乳杆菌RX-8(Lactiplantibacillus plantarum RX-8)分别与枯草芽孢杆菌、异常威克汉姆酵母Y-5(Wickerhamomyces anomalus Y-5)进行共培养,都能促进细菌素的高效合成[32-33]。这一研究结果表明,不同种类的信号分子可能在共培养体系中形成协同作用,增强细菌素合成的效率。

3.3 异源表达

异源表达技术是通过基因工程手段将供体生物的功能性基因簇导入异源宿主,借助宿主的转录翻译系统合成目标蛋白质,为微生物活性物质的高效生产提供了新途径[34]。目前常用的宿主系统包括大肠杆菌表达系统、酵母表达系统、乳酸菌表达系统,宿主选择时需综合考虑遗传背景清晰度、蛋白质分泌能力及生物安全性。不同异源表达系统优缺点见表2
表2 不同异源表达系统优缺点

Table 2 Advantages and disadvantages of different heterologous expression systems

类别
Classifications
优点
Advantages
缺点
Disadvantages
大肠杆菌表达系统
Escherichia coli expression system
遗传背景清晰,基因表达可控,
培养成本低,目的蛋白产量高
翻译后加工修饰系统不完善,
易产生内毒素和包涵体,纯化操作困难
酵母表达系统
Yeast expression system
培养条件简单,生长迅速,表达
时间短,操作简单,易于培养等特点
分泌蛋白易被自身分泌的蛋白酶
酶解;甲醇诱导时由于甲醇存在毒性,
需控制表达条件
乳酸菌表达系统
Lactic acid bacteria expression system
无致病性,安全性高,无内
毒素,基因可调控性强
易受温度影响,基因表达水平相对较低,
系统构建与优化复杂

3.3.1 大肠杆菌表达系统

大肠杆菌作为异源表达的宿主,其优点包括:遗传背景清晰、基因表达可控、培养成本低、目标蛋白产量高,所以大肠杆菌表达系统成为乳酸菌细菌素(如Ⅰ类nisin[35]、Ⅱa类片球菌素PA-1[36]、干酪乳杆菌素AB[37])异源表达的首选宿主。Ⅱa类细菌素是乳酸菌细菌素中规模最大、研究最广泛的一个类别[38],包括植物乳杆菌素LPL-1(plantaricin LPL-1)、片球菌素PA-1等。王玉等[39]通过基因编辑技术CRISPR-Cas9[40]对大肠杆菌BW25113(Escherichia coli BW25113)进行多重基因组编辑,构建优化的工程菌株大肠杆菌BW25113(ΔtrxB+Δgor+ahpCM),通过异源表达系统实现了植物乳杆菌素LPL-1的高效表达,比活力达2 690.62 AU/mg,回收率显著提高10.67%。Mesa-Pereira等[41]在大肠杆菌TunerTM(DE3)感受态细胞中实现Ⅱa类细菌素片球菌素PA-1和Ⅱd类细菌素唾液乳杆菌素A(bactofencin A)的功能性表达与分泌,仅需结构基因和ABC转运蛋白即可实现活性表达。
除Ⅱa类细菌素之外,Ⅱb类细菌素基因利用大肠杆菌表达系统后,抑菌性也呈现显著提升[37,42-44]。Meng等[45]研究发现,植物乳杆菌163(Lactiplantibacillus plantarum 163)中的细菌素较完整植物乳杆菌素E序列缺少19个氨基酸,成为突变体,从Lactiplantibacillus plantarum 163中克隆了具有信号肽的plnE(植物乳杆菌素基因)较不具有信号肽的突变体plnEm(不具有信号肽的植物乳杆菌素基因),在大肠杆菌BL21(DE3)中表达后对多种革兰氏阳性菌具有更为显著的抑菌性。

3.3.2 酵母表达系统

酵母菌作为异源表达的宿主其主要优点包括:培养条件简单、生长迅速、表达时间短、操作简单、易于培养等,同时,酵母菌表达系统中有外分泌信号的序列,可将细菌素目的基因重组到酵母宿主上,表达的蛋白可分泌到细胞外,在上清液表达易纯化[46]。这在一定程度上降低了后续细菌素分离纯化的难度。
该表达系统常用的菌株有毕赤酵母(Komagataella phaffii)、酿酒酵母等,Basanta等[47]首次使用毕赤酵母进行双肽细菌素的异源表达和分泌,成功将Ⅱc类细菌素肠球菌素L50A(enterocin 50A)和肠球菌素L50B (enterocin 50B)在Komagataella phaffii X-33中进行异源表达。多项研究表明,Ⅱa类细菌素作为强抗李斯特菌的Ⅱ类细菌素,其在Komagataella phaffii中异源表达后抑菌活性明显增加[48-50],同时片球菌素PA-1在25 μg/mL浓度下对人源肺腺癌(A549)和宫颈癌(HeLa)细胞具有抑制活性,具有潜在抗肿瘤应用价值[49]。Jiménez等[51]将肠球菌素A基因簇和E50-52基因簇在Komagataella phaffii进行异源表达,2种纯化的细菌素对革兰氏阳性菌(如李斯特菌)都具有抑菌活性,但对革兰氏阴性菌(包括弯曲杆菌)不具有抑菌效果。Rossouw等[52]在酿酒酵母中利用组成型启动子α-烯醇化酶(ENO1)和α1-交配因子(MFα1)分泌信号以表达Ⅱa类细菌素植物乳杆菌素423和蒙氏肠球菌素ST4SA(mundticin ST4SA,MunX),密码子优化后MunX活性提高8倍,产量达20.9 mg/L,纯度>95%,且重组肽对李斯特菌的最低抑菌浓度(MIC)低至108.52 nmol/L。

3.3.3 乳酸菌表达系统

乳酸菌作为公认安全(generally recognized as safe,GRAS)的宿主,尤其适用于食品源细菌素的表达,具备天然免疫系统和适配的翻译后修饰环境。以乳酸菌作为宿主异源表达细菌素,表达量不高,且筛选标记可能存在安全性问题,是研究报道相对较少的主要原因[53]
目前,乳酸菌表达系统常用的宿主为乳酸乳球菌(Lactococcus lactis)。多项研究表明,将乳酸菌细菌基因导入Lactococcus lactis后能够正常表达,表现出较好的抗菌性,并且能够提高部分细菌素的抑菌能力[54-57]。Ma等[58]在植物乳杆菌LB-B1(Lactiplantibacillus plantarum LB-B1)中共表达片球菌素PA-1和微菌素V(microcin V),利用片球菌素的ABC转运蛋白系统实现双肽分泌,两者协同显著增强抑菌效果并拓宽抗菌谱。此外,研究发现,存在一些细菌素经过Lactococcus lactis异源表达后,会失去抑菌活性,比如Yu等[59]将长双歧杆菌DJO10A(Bifidobacterium longum DJO10A)基因簇导入Lactococcus lactis后未检测到活性产物,但成功表达所有肽段和酶。
通过基因挖掘技术可发现许多新型细菌素,如在发酵黏液乳杆菌LBM97(Limosilactobacillus fermentum LBM97)中挖掘出LBM97-1、LBM97-4和LBM97-5多个活性细菌素,通过无标记检测(label-free)蛋白质组学技术结合异源表达,发现LBM97-5在pH为2~10、温度60~121 ℃条件下仍具有高稳定性[60],被认定为新型细菌素。类似的,鼠李糖乳杆菌LS-8(Lactobacillus rhamnosus LS-8)被证实能够产生14种新型细菌素,结合基因组学与肽组学技术并通过异源表达验证其广谱抗菌活性,其中4种细菌素(pH25、S68、S81和S137)都具有较好抗菌能力[61]
异源表达措施可以提高细菌素产量,但是表达过程中部分蛋白会以包涵体的形式出现,进而降低其生物活性。针对该问题,可以借助融合标签技术予以解决[62]。融合标签可通过化学试剂或识别特异性位点蛋白酶进行精准切除,该标签设计常旨在提高蛋白质溶解度,从而有助于预防包涵体形成[63]

3.4 诱变育种

诱变育种指通过物理或化学方法诱导菌株发生突变,是一种操作简便、效率高、广泛应用于提高乳酸菌细菌素产量的措施。陈瑞龙[64]以植物乳杆菌JL-A65(Lactiplantibacillus plantarum JL-A65)为出发菌株,采用常温等离子体(atmospheric room temperature plasma,ARTP)诱变菌株获得突变株A7-10和A8-110,细菌素产量分别提升45.1%和48.9%;经甲基硝基亚硝基胍(1-methyl-3-nitro-1-nitrosoguanidine,MNNG)处理获得突变株M2-58和M7-111,细菌素产量分别提升46.6%和31.3%。王芳[65]通过紫外(ultraviolet,UV)、亚硝基胍(nitrosoguanidine,NTG)、钴-60γ射线(60Coγ)和ARTP这4种诱变方式处理原始抑菌效价为2 202.84 IU/mL的植物乳杆菌JLA-9菌株,筛选出8株抑菌效价提高14%~48%的突变株,并进一步通过基因组改组技术选育出高效稳定菌株F4-2,效价提高2.35倍。
复合诱变措施具有有效叠加不同诱变方式的优势,可以显著提升细菌素产量并维持遗传稳定性[66-69],为工业化生产提供高效菌种资源。复合诱变可避免单一诱变的饱和效应,提高正向突变率;结合基因组改组技术和响应面优化方法可系统提高菌株性能;诱变育种可与包埋、复配等应用技术结合,来拓展细菌素在饲料防腐乃至食品保鲜中的实际应用潜力。

4 乳酸菌细菌素在饲料中的应用

乳酸菌细菌素可以用于配合饲料,同时可以应用于青贮饲料,乳酸菌细菌素作为饲料添加剂,可以防止饲料本身被致病菌污染,在很大程度上切断致病菌对动物的危害[18,70-71]。动物采食含有乳酸菌细菌素的饲料后,不仅可以缓解病原菌诱发的炎症反应,而且能通过对病原体的特异性抑制来调节肠道生态平衡[72-73]。同时,乳酸菌细菌素能够增加饲料风味促进动物采食,从而改善动物生长性能及产品品质。

4.1 乳酸菌细菌素在配合饲料中的应用

乳酸菌细菌素作为饲料添加剂,常与干饲料混合后进行饲喂[74]。研究表明,在畜禽饲料中使用乳酸菌细菌素,可以改善畜禽生长性能,减少疾病的发生。比如,将nisin作为肉鸡饲料添加剂,可以调节肠道微生物结构、减少肠道有害菌的生长、改善营养利用效率及生长性能[75-77]。Ogunbanwo等[78]通过饮水添加细菌素或者通过饲喂植物乳杆菌F1培养液饲粮干预感染大肠杆菌的肉鸡,可以有效控制肉鸡感染情况。妥强等[79]将乳酸菌细菌素与益生菌联用作为肉鸡饲料添加剂,可显著提高肉鸡体重(BW)、采食量、日增重及器官重量,改善肉品质,增强机体抗氧化与免疫功能,同时还可改善肠道黏膜形态、提高肠道有益菌丰度并优化肠道菌群结构。范慧敏等[80]研究发现,nisin作为饲料添加剂可以显著提升肉兔的生长性能,提高养分表观消化率,降低死亡率,同时能够降低血清中炎症因子白细胞介素-6(IL-6)水平,提高血清中抗氧化酶谷胱甘肽过氧化物酶(GSH-Px)活性,且最佳添加剂量为500 g/t。
乳酸菌细菌素作为饲料添加剂应用于猪生产中也具有优异表现。李晓波等[81]研究发现,妊娠母猪饲粮中添加0.25 g/kg BW乳酸菌细菌素,能显著提高窝产仔数、活仔数、健仔数和初生重,降低弱仔率与死胎率,并显著提高哺乳仔猪的存活率与健康水平。Casadei等[82]进行戊糖片球菌素(pediocin A)的体外试验发现,戊糖片球菌素A对小肠的发酵参数无显著影响,但显著抑制猪小肠和大肠中梭菌和大肠杆菌的生长。

4.2 产细菌素乳酸菌在青贮饲料中的应用

乳酸菌细菌素作为青贮饲料添加剂,可抑制青贮饲料中有害菌的繁殖,减少干物质损失。如Amado等[83]在玉米青贮中添加Ⅱa类细菌素乳酸片球菌素SA-1(pediocin SA-1),可有效控制青贮饲料中李斯特菌的增殖,改善青贮饲料的发酵品质以及有氧稳定性。Li等[84]在苜蓿青贮制备中添加Ⅰ类细菌素nisin,使青贮饲料中有益菌丰度增加、干物质损失减少。在青贮饲料的实际生产中,产细菌素乳酸菌多以发酵菌剂的形式添加。研究表明,产细菌素乳酸菌用于青贮饲料发酵,可以改善饲料品质,且反刍动物采食后可以抑制瘤胃有害菌的增殖。如李子谦[85]将产Ⅱa类细菌素植物乳杆菌ATCC14917(Lactiplantibacillus plantarum ATCC14917)和植物乳杆菌CICC24194(Lactiplantibacillus plantarum CICC24194)作为发酵菌剂,与不产细菌素商业植物乳杆菌MTD作对比,结果表明,产细菌素乳酸菌在提高全株玉米青贮的干物质保留率、乳酸产量和体外干物质消化率的同时,可降低甲烷产量,表现出更好的应用效果;其中植物乳杆菌CICC24194通过降低瘤胃球菌科UCG-005(Ruminococcaceae UCG-005)、产甲烷菌及纤维分解菌丰度,在降低甲烷排放(降低7.3%~17.8%)和促进丙酸生成中发挥关键作用。Li等[86]将产Ⅱa类细菌素菌株德氏乳杆菌F17(Lactobacillus delbrueckii F17)和植物乳杆菌BNCC336943(Lactiplantibacillus plantarum BNCC336943)与不产细菌素商业植物乳杆菌MTD对比,产细菌素乳酸菌在苜蓿青贮中能够更有效的抑制酵母菌和霉菌,提高饲料有氧稳定性以及水溶性碳水化合物和粗蛋白质含量,降低纤维和氨态氮含量。

5 小结与展望

培养条件优化、共培养诱导、异源表达及诱变育种等措施可以促进乳酸菌细菌素的高效表达,显著提高乳酸菌细菌素产量与活性。将其应用到饲料中,可以抑制饲料中病原菌和杂菌生长、延缓饲料腐败变质,优化畜禽肠道菌群结构、降低患病率,进而改善畜禽生产性能以及产品品质;另外,产细菌素乳酸菌作为青贮发酵剂,可有效抑制反刍动物瘤胃甲烷生成,提高挥发性脂肪酸产量,提高饲料转化率,并减少干物质损失和氨态氮含量,这些特性为乳酸菌细菌素在饲料中的规模化应用奠定了重要基础。未来仍需构建稳定、高效的生产体系,以保障乳酸菌细菌素高产与稳定,突破产量瓶颈,推动其规模化应用。
[1]
饲料“禁抗令”7月1日施行对产业链影响几何?[J]. 北方牧业, 2020(13):10-11.

What is the impact of the implementation of the feed ‘prohibition order’ on the industrial chain on July 1?[J]. Northern Animal Husbandry, 2020(13):10-11. (in Chinese)

[2]
何江波, 姚志芳, 吴国芳, 等. 乳酸菌制剂益生特性及在畜牧业中的应用研究进展[J]. 家畜生态学报, 2020, 41(8):85-89.

HE J B, YAO Z F, WU G F, et al. Research progress on probiotic characteristics of lactic acid bacteria preparation and its application in animal husbandry[J]. Acta Ecologiae Animalis Domastici, 2020, 41(8):85-89. (in Chinese)

[3]
任青霞, 户行宇, 张敏, 等. 植物乳杆菌NMGL2的安全性评价及其产细菌素发酵条件优化[J]. 中国食品学报, 2024, 24(9):184-193.

REN Q X, HU H Y, ZHANG M, et al. Safety assessment of Lactiplantibacillus plantarum NMGL2 and optimization of fermentation conditions of bacteriocin-producing[J]. Journal of Chinese Institute of Food Science and Technology, 2024, 24(9):184-193. (in Chinese)

[4]
赵露, 迟雪梅, 李田田, 等. 高产细菌素乳酸菌的筛选及发酵工艺优化[J]. 中国调味品, 2025, 50(5):110-120,190.

ZHAO L, CHI X M, LI T T, et al. Screening and fermentation process optimization of lactic acid bacteria with high-yield bacteriocin[J]. China Condiment, 2025, 50(5):110-120,190. (in Chinese)

[5]
ARNISON P G, BIBB M J, BIERBAUM G, et al. Ribosomally synthesized and post-translationally modified peptide natural products:overview and recommendations for a universal nomenclature[J]. Natural Product Reports, 2013, 30(1):108-160.

[6]
李萍, 龙春昊, 赵轩, 等. Ⅱ类细菌素的生物合成及其在食品领域的应用[J]. 中国食品学报, 2021, 21(10):269-286.

LI P, LONG C H, ZHAO X, et al. Biosynthesis of class Ⅱ bacteriocin and its application in food preservation[J]. Journal of Chinese Institute of Food Science and Technology, 2021, 21(10):269-286. (in Chinese)

[7]
CUI Y H, ZHANG C, WANG Y F, et al. Class ⅡA bacteriocins:diversity and new developments[J]. International Journal of Molecular Sciences, 2012, 13(12):16668-16707.

[8]
NISSEN-MEYER J, OPPEGÅRD C, ROGNE P, et al.Structure and mode-of-action of the two-peptide (class-Ⅱ

b) bacteriocins[J]. Probiotics and Antimicrobial Proteins, 2010, 2(1):52-60.

[9]
赵鹏昊, 尚佳萃, 陈禹含, 等. 双肽(Ⅱb类)菌素的结构特点及其与功能的关系[J]. 食品科学, 2023, 44(9):170-176.

ZHAO P H, SHANG J C, CHEN Y H, et al.Structural characteristics of two-peptide (class Ⅱ

b) bacteriocins and their relationship with function[J]. Food Science, 2023, 44(9):170-176. (in Chinese)

[10]
MARTIN-VISSCHER L A, GONG X D, DUSZYK M, et al. The three-dimensional structure of carnocyclin A reveals that many circular bacteriocins share a common structural motif[J]. Journal of Biological Chemistry, 2009, 284(42):28674-28681.

[11]
MASUDA Y, ZENDO T, SONOMOTO K. New type non-lantibiotic bacteriocins:circular and leaderless bacteriocins[J]. Beneficial Microbes, 2012, 3(1):3-12.

[12]
KRISTIANSEN P E, PERSSON C, FUOCHI V, et al. Nuclear magnetic resonance structure and mutational analysis of the lactococcin A immunity protein[J]. Biochemistry, 2016, 55(45):6250-6257.

[13]
NILSEN T, NES I F, HOLO H. Enterolysin A,a cell wall-degrading bacteriocin from Enterococcus faecalis LMG 2333[J]. Applied and Environmental Microbiology, 2003, 69(5):2975-2984.

[14]
XU J, WANG Z C, SHI Z H, et al. Detection and development of lactic acid bacteria bacteriocins-A hint on the screening of bacteriocins of lactic acid bacteria[J]. LWT, 2025, 222:117627.

[15]
BAKHTIARY A, COCHRANE S A, MERCIER P, et al. Insights into the mechanism of action of the two-peptide lantibiotic lacticin 3147[J]. Journal of the American Chemical Society, 2017, 139(49):17803-17810.

[16]
LEE H, KIM H Y. Lantibiotics,class Ⅰ bacteriocins from the genus Bacillus[J]. Journal of Microbiology and Biotechnology, 2011, 21(3):229-235.

[17]
MOON G S, PYUN Y R, KIM W J. Expression and purification of a fusion-typed pediocin PA-1 in Escherichia coli and recovery of biologically active pediocin PA-1[J]. International Journal of Food Microbiology, 2006, 108(1):136-140.

[18]
孙淑倩, 徐凤娟, 王磊, 等. 乳酸菌细菌素的研究与应用[J]. 食品科技, 2024, 49(9):12-18.

SUN S Q, XU F J, WANG L, et al. Research and application of lactic acid bacteria bacteriocins[J]. Food Science and Technology, 2024, 49(9):12-18. (in Chinese)

[19]
ZHENG S, SONOMOTO K. Diversified transporters and pathways for bacteriocin secretion in Gram-positive bacteria[J]. Applied Microbiology and Biotechnology, 2018, 102(10):4243-4253.

[20]
WANG Y, SHANG N, HUANG Y Y, et al. The progress of the biotechnological production of class Ⅱa bacteriocins in various cell factories and its future challenges[J]. International Journal of Molecular Sciences, 2024, 25(11):5791.

[21]
安宇, 王颖, 易华西, 等. 植物乳杆菌M1-NTG300产细菌素培养条件优化[J]. 食品与机械, 2020, 36(8):178-182,209.

AN Y, WANG Y, YI H X, et al. Optimizing conditions of producing bacteriocin by Lactobacillus plantarum M1-NTG300[J]. Food & Machinery, 2020, 36(8):178-182,209. (in Chinese)

[22]
方利敏. 产细菌素乳酸菌的筛选鉴定及其细菌素合成的培养优化及诱导作用研究[D]. 硕士学位论文. 南昌: 江西农业大学, 2021.

FANG L M. Isolation and identification of bacteriocin-producing lactic acid bacteria and study on their culture optimization and induction of bacteriocin synthesis[D]. Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2021. (in Chinese)

[23]
章检明. 植物乳杆菌B23合成细菌素发酵条件优化及诱导调控研究[D]. 硕士学位论文. 哈尔滨: 哈尔滨工业大学, 2015.

ZHANG J M. Optimization of fermentation conditions and research of induction regulation for bacteriocin production by Lactobacillus plantarum B23[D]. Master’s Thesis. Harbin: Harbin Institute of Technology, 2015. (in Chinese)

[24]
匡珍, 李学英, 陶乐仁, 等. 乳酸乳球菌K6产Nisin Z的条件优化[J]. 中国食品学报, 2020, 20(10):115-123.

KUANG Z, LI X Y, TAO L R, et al. Optimization of production conditions of Nisin Z by Lactococcus lactis K6[J]. Journal of Chinese Institute of Food Science and Technology, 2020, 20(10):115-123. (in Chinese)

[25]
QIAO X X, DU R P, WANG Y, et al. Isolation,characterisation and fermentation optimisation of bacteriocin-producing Enterococcus faecium[J]. Waste and Biomass Valorization, 2020, 11(7):3173-3181.

[26]
曾承露, 李锋, 黄德娜. 棉籽糖乳球菌Y-12产细菌素培养条件优化[J]. 食品工业科技, 2017, 38(18):123-128.

ZENG C L, LI F, HUANG D N. Optimization of the cultivation conditions for bacteriocin production of Lactococcus raffinolactis Y-12[J]. Science and Technology of Food Industry, 2017, 38(18):123-128. (in Chinese)

[27]
李轩伊. 乳酸菌产细菌素生物学特性的研究及培养条件优化[D]. 硕士学位论文. 大连: 大连工业大学, 2017.

LI X Y. Optimization of culture conditions and biological characteristics of bacteriocin by lactic acid bacteria[D]. Master’s Thesis. Dalian: Dalian Polytechnic University, 2017. (in Chinese)

[28]
QIAN X, TIAN P J, ZHAO J X, et al. Quorum sensing of lactic acid bacteria:progress and insights[J]. Food Reviews International, 2023, 39(7):4781-4792.

[29]
WU S B, LIU J H, LIU C J, et al. Quorum sensing for population-level control of bacteria and potential therapeutic applications[J]. Cellular and Molecular Life Sciences, 2020, 77(7):1319-1343.

[30]
MAN L L, XIANG D J. Effect of LuxS/AI-2-mediated quorum sensing system on bacteriocin production of Lactobacillus plantarum NMD-17[J]. Folia Microbiologica, 2023, 68(6):855-866.

[31]
MALDONADO A, RUIZ-BARBA J L, JIMÉNEZ-DÍAZ R. Production of plantaricin NC8 by Lactobacillus plantarum NC8 is induced in the presence of different types of Gram-positive bacteria[J]. Archives of Microbiology, 2004, 181(1):8-16.

[32]
刘国荣, 刘洋硕, 聂蓉. 微生物共培养促进植物乳杆菌RX-8高效合成细菌素的调控机制[J]. 中国食品学报, 2023, 23(9):32-43.

LIU G R, LIU Y S, NIE R. The regulation mechanism of microbial co-cultivation to promote the efficient synthesis of bacteriocin by Lactobacillus plantarum RX-8[J]. Journal of Chinese Institute of Food Science and Technology, 2023, 23(9):32-43. (in Chinese)

[33]
聂蓉. 酵母菌共培养诱导Lactiplantibacillus paraplantarum RX-8代谢产细菌素的调控机制研究[D]. 硕士学位论文. 北京: 北京工商大学, 2023.

NIE R. Study on the regulation mechanism of bacteriocin biosynthesis in Lactiplantibacillus paraplantarum RX-8 induced by co-culture with yeast[D]. Master’s Thesis. Beijing: Beijing Technology and Business University, 2023. (in Chinese)

[34]
PEIROTÉN Á, LANDETE J M. Natural and engineered promoters for gene expression in Lactobacillus species[J]. Applied Microbiology and Biotechnology, 2020, 104(9):3797-3805.

[35]
SHI Y X, YANG X, GARG N, et al. Production of lantipeptides in Escherichia coli[J]. Journal of the American Chemical Society, 2011, 133(8):2338-2341.

[36]
LIU S N, HAN Y, ZHOU Z J. Fusion expression of pedA gene to obtain biologically active pediocin PA-1 in Escherichia coli[J]. Journal of Zhejiang University Science B, 2011, 12(1):65-71.

[37]
YU W, MA J G, CHEN X Q, et al. Expression and purification of recombinant Lactobacillus casei bacteriocin and analysis of its antibacterial activity[J]. CyTA-Journal of Food, 2020, 18(1):301-308.

[38]
YI Y L, LI P, ZHAO F, et al. Current status and potentiality of class Ⅱ bacteriocins from lactic acid bacteria:structure,mode of action and applications in the food industry[J]. Trends in Food Science & Technology, 2022, 120:387-401.

[39]
王玉, 王瑶, 李平兰. 植物乳杆菌素LPL-1的异源表达及理化性质分析[J]. 食品科学, 2023, 44(20):100-106.

WANG Y, WANG Y, LI P L. Heterologous expression and physicochemical properties of plantaricin LPL-1[J]. Food Science, 2023, 44(20):100-106. (in Chinese)

[40]
罗刚, 程依依, 杨雯, 等. CRISPR-Cas12a基因编辑技术及其在农业生产中的应用[J]. 中国农业科学, 2025, 58(7):1434-1450.

LUO G, CHENG Y Y, YANG W, et al. CRISPR-Cas12a gene editing technology and its application in agricultural production[J]. Scientia Agricultura Sinica, 2025, 58(7):1434-1450. (in Chinese)

[41]
MESA-PEREIRA B, O’CONNOR P M, REA M C, et al. Controlled functional expression of the bacteriocins pediocin PA-1 and bactofencin A in Escherichia coli[J]. Scientific Reports, 2017, 7(1):3069.

[42]
阮晓莉, 冉军舰, 赵瑞香, 等. 植物乳杆菌细菌素基因plnEF的克隆与异源表达[J]. 食品工业科技, 2019, 40(16):107-111,117.

RUAN X L, RAN J J, ZHAO R X, et al. Clone and heterologly expression of bacteriocin gene plnEF of Lactobacillus plantarum[J]. Science and Technology of Food Industry, 2019, 40(16):107-111,117. (in Chinese)

[43]
JIANG H, LI P, GU Q. Heterologous expression and purification of plantaricin NC8,a two-peptide bacteriocin against Salmonella spp. from Lactobacillus plantarum ZJ316[J]. Protein Expression and Purification, 2016, 127:28-34.

[44]
TANG X, WU S S, WANG X F, et al. Antimicrobial activity and preliminary mode of action of PlnEF expressed in Escherichia coli against staphylococci[J]. Protein Expression and Purification, 2018, 143:28-33.

[45]
MENG F Q, ZHU X Y, LU F X, et al. Functional analysis of plantaricin E and its mutant by heterologous expression in Escherichia coli[J]. Applied Biochemistry and Biotechnology, 2017, 182(1):311-323.

[46]
王凌利. 猪链球菌细菌素的筛选及其异源表达和活性鉴定[D]. 硕士学位论文. 北京: 中国农业科学院, 2022.

WANG L L. Screening and heterologous expression of suicin and activity identification[D]. Master’s Thesis. Beijing: The Chinese Academy of Agricultural Sciences, 2022. (in Chinese)

[47]
BASANTA A, GÓMEZ-SALA B, SÁNCHEZ J, et al. Use of the yeast Pichia pastoris as an expression host for secretion of enterocin L50,a leaderless two-peptide (L50A and L50B) bacteriocin from Enterococcus faecium L50[J]. Applied and Environmental Microbiology, 2010, 76(10):3314-3324.

[48]
BORRERO J, KUNZE G, JIMÉNEZ J J, et al.Cloning, production,and functional expression of the bacteriocin enterocin A,produced by Enterococcus faecium T136,by the yeasts Pichia pastoris,Kluyveromyces lactis,Hansenula polymorpha,and Arxula adeninivorans[J]. Applied and Environmental Microbiology, 2012, 78(16):5956-5961.

[49]
THU N P A, NGHIA N H, THAO D T P, et al. Heterologous expression of pediocin PA-1 in Pichia pastoris:cloning,expression,characterization,and application in pork bologna preservation[J]. Brazilian Journal of Microbiology, 2024, 55(3):2169-2177.

[50]
LI Z X, CHENG Q, GUO H N, et al. Expression of hybrid peptide EF-1 in Pichia pastoris,its purification,and antimicrobial characterization[J]. Molecules, 2020, 25(23):5538.

[51]
JIMÉNEZ J J, BORRERO J, GÚTIEZ L, et al. Use of synthetic genes for cloning, production and functional expression of the bacteriocins enterocin A and bacteriocin E 50-52 by Pichia pastoris and Kluyveromyces lactis[J]. Molecular Biotechnology, 2014, 56(6):571-583.

[52]
ROSSOUW M, CRIPWELL R A, VERMEULEN R R, et al. Heterologous expression of plantaricin 423 and mundticin ST4SA in Saccharomyces cerevisiae[J]. Probiotics and Antimicrobial Proteins, 2024, 16(3):845-861.

[53]
满丽莉, 向殿军. 共培养诱导乳酸菌细菌素合成的研究进展[J]. 中国调味品, 2023, 48(10):214-220.

MAN L L, XIANG D J. Research progress of co-culture induced bacteriocin synthesis of lactic acid bacteria[J]. China Condiment, 2023, 48(10):214-220. (in Chinese)

[54]
BORRERO J, KELLY E, O’CONNOR P M, et al. Plantaricyclin A,a novel circular bacteriocin produced by Lactobacillus plantarum NI326:purification,characterization,and heterologous production[J]. Applied and Environmental Microbiology, 2018, 84(1):e01801-e01817.

[55]
MUSTOPA A Z, MARIYAH S, FATIMAH, et al.Construction heterologous expression, partial purification,and in vitro cytotoxicity of the recombinant plantaricin E produced by Lactococcus lactis against Enteropathogenic Escherichia coli K.1.1 and human cervical carcinoma (HeLa) cells[J]. Molecular Biology Reports, 2018, 45(5):1235-1244.

[56]
XU Y L, YANG L L, LI P, et al. Heterologous expression of class Ⅱb bacteriocin plantaricin JK in Lactococcus lactis[J]. Protein Expression and Purification, 2019, 159:10-16.

[57]
PEREZ R H, ISHIBASHI N, INOUE T, et al. Functional analysis of genes involved in the biosynthesis of enterocin NKR-5-3B,a novel circular bacteriocin[J]. Journal of Bacteriology, 2016, 198(2):291-300.

[58]
MA X Y, WANG G H, LI D, et al. Microcin V production in Lactobacillus plantarum LB-B1 using heterologous leader peptide from pediocin PA-1[J]. Current Microbiology, 2016, 72(3):357-362.

[59]
YU L, LIU X D, O’SULLIVAN D J. Use of Lactococcus lactis as a production system for peptides and enzymes encoded by a lantibiotic gene cluster from Bifidobacterium longum[J]. Microbiology, 2018, 164(12):1481-1490.

[60]
GU Y X, ISMAEL M, WANG X, et al. Mining and heterologous expression of bacteriocins from Limosilactobacillus fermentum LBM97[J]. Food Bioscience, 2021, 44( Pt A):101389.

[61]
GUO X, CHEN J X, SUN H M, et al.Mining heterologous expression, purification and characterization of 14 novel bacteriocins from Lactobacillus rhamnosus LS-8[J]. International Journal of Biological Macromolecules, 2020, 164:2162-2176.

[62]
KÖPPL C, BUCHINGER W, STRIEDNER G, et al. Modifications of the 5’ region of the CASPONTM tag’s mRNA further enhance soluble recombinant protein production in Escherichia coli[J]. Microbial Cell Factories, 2024, 23(1):86.

[63]
TANG N C, SU J C, SHMIDOV Y, et al. Synthetic intrinsically disordered protein fusion tags that enhance protein solubility[J]. Nature Communications, 2024, 15(1):3727.

[64]
陈瑞龙. 植物乳杆菌细菌素高产菌株的诱变选育、抑菌机理及应用[D]. 硕士学位论文. 南京: 南京农业大学, 2018.

CHEN R L. Screening of high-yield bacteriocin producing strains induced by mutations and the antimicrobial mechanism and applicationg of plantaricin[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2018. (in Chinese)

[65]
王芳. 植物乳杆菌高产细菌素菌株诱变选育及其应用研究[D]. 硕士学位论文. 南京: 南京农业大学, 2017.

WANG F. Screenging and application of high-yield bacteriocin producing Lactobacillus plantarum strains by mutations and breeding[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2017. (in Chinese)

[66]
李梦瑶, 徐静宇, 肖四生, 等. 细菌素高产菌株的诱变选育及其液体发酵动力学分析[J]. 食品与发酵工业, 2025, 51(10):56-62.

LI M Y, XU J Y, XIAO S S, et al. Mutation breeding and its liquid fermentation kinetics analysis of bacteriocin high-yielding strains[J]. Food and Fermentation Industries, 2025, 51(10):56-62. (in Chinese)

[67]
洪伟, 李鑫, 孙浩浩, 等. 诱变选育高抑菌活性植物乳杆菌及发酵条件优化[J]. 池州学院学报, 2023, 37(6):45-50.

HONG W, LI X, SUN H H, et al. Selecting of Lactobacillus plantarum for high antibacterial activity by mutagenesis and optimization of fermentation conditions[J]. Journal of Chizhou University, 2023, 37(6):45-50. (in Chinese)

[68]
安宇, 王颖, 佐兆杭, 等. 复合诱变选育新型高产细菌素植物乳杆菌[J]. 中国生物制品学杂志, 2019, 32(3):265-271,285.

AN Y, WANG Y, ZUO Z H, et al. Breeding of new high bacteriocin-producing Lactobacillus plantarum by complex mutagenesis[J]. Chinese Journal of Biologicals, 2019, 32(3):265-271,285. (in Chinese)

[69]
党丽娟, 高钰淇, 别小妹, 等. 60Co γ射线复合硫酸二乙酯诱变选育高产新型细菌素Plantaricin 163-1菌株的研究[J]. 食品工业科技, 2015, 36(15):174-179.

DANG L J, GAO Y Q, BIE X M, et al. Screening of high-yeilding plantaricin 163-1 strains induced by 60Co γ-ray and diethyl sulfate[J]. Science and Technology of Food Industry, 2015, 36(15):174-179. (in Chinese)

[70]
魏晓燕. 嗜酸乳杆菌发酵棉粕中细菌素的研究[D]. 硕士学位论文. 石河子: 石河子大学, 2014.

WEI X Y. Investigation on bacteriocins produced by Lactobacillus acidophilus fermented with cottonseed meal mixed substrates[D]. Master’s Thesis. Shihezi: Shihezi University, 2014. (in Chinese)

[71]
高会军. 细菌素作用方式及其在饲料和养殖中的应用[J]. 农业科技与装备, 2018(3):74-75.

GAO H J. The action mode of bacteriocin and its application in feed and cultivation[J]. Agricultural Science & Technology and Equipment, 2018(3):74-75. (in Chinese)

[72]
王佰涛, 杨文玲, 李灵平, 等. 微生物发酵饲料替抗机理研究进展[J]. 中国饲料, 2022(1):10-13,18.

WANG B T, YANG W L, LI L P, et al. Research progress on mechanism of microbial fermentation feed replacing antibiotics[J]. China Feed, 2022(1):10-13,18. (in Chinese)

[73]
沈雷. 植物乳杆菌ZJ217产细菌素的研究[D]. 硕士学位论文. 杭州: 浙江工商大学, 2013.

SHEN L. The study of bacteriocin produced by Lactobacillus plantarum ZJ217[D]. Master’s Thesis. Hangzhou: Zhejiang Gongshang University, 2013. (in Chinese)

[74]
杨旭, 方华, 沈城, 等. 细菌素研究进展及其在动物饲料中的应用[J]. 饲料研究, 2017(6):5-7,16.

YANG X, FANG H, SHEN C, et al. Research progress of bacteriocin and its application in animal feed[J]. Feed Research, 2017(6):5-7,16. (in Chinese)

[75]
JÓZEFIAK D, KIEROŃCZYK B, JUŚKIEWICZ J, et al. Dietary nisin modulates the gastrointestinal microbial ecology and enhances growth performance of the broiler chickens[J]. PLoS One, 2013, 8(12):e85347.

[76]
KIEROŃCZYK B, PRUSZYŃSKA-OSZMAŁEK E, ŚWIATKIEWICZ S, et al. The nisin improves broiler chicken growth performance and interacts with salinomycin in terms of gastrointestinal tract microbiota composition[J]. Journal of Animal and Feed Sciences, 2016, 25(4):309-316.

[77]
O’CONNOR P M, KUNIYOSHI T M, OLIVEIRA R P, et al. Antimicrobials for food and feed;a bacteriocin perspective[J]. Current Opinion in Biotechnology, 2020, 61:160-167.

[78]
OGUNBANWO S T, SANNI A I, ONILUDE A A. Influence of bacteriocin in the control of Escherichia coli infection of broiler chickens in Nigeria[J]. World Journal of Microbiology and Biotechnology, 2004, 20(1):51-56.

[79]
妥强, 杨慧超, 李瑞国, 等. 细菌素协同益生菌对白羽肉鸡生长性能、屠宰性能、肠道形态及肠道菌群的影响[J]. 华北农学报, 2023, 38(增刊1):413-422.

TUO Q, YANG H C, LI R G, et al. Effects of bacteriocins and probiotics on growth performance,slaughter performance,intestinal morphology and intestinal flora of white-feathered broilers[J]. Acta Agriculturae Boreali-Sinica, 2023,38 (Suppl.1):413-422. (in Chinese)

[80]
范慧敏, 贾子凡, 韩雯笑, 等. 乳酸链球菌素对肉兔生长性能、养分消化、免疫性能和抗氧化能力的影响[J]. 动物营养学报, 2025, 37(3):1963-1971.

FAN H M, JIA Z F, HAN W X, et al. Effects of nisin on growth performance,nutrient digestion,immunity and antioxidant capacity of meat rabbits.[J]. Chinese Journal of Animal Nutrition, 2025, 37(3):1963-1971. (in Chinese)

[81]
李晓波, 张苗蕊, 周开运. 饲料中乳酸菌素对母猪繁殖性能及哺乳仔猪生长性能的影响[J]. 当代畜牧, 2024(7):35-36.

LI X B, ZHANG M R, ZHOU K Y. Effects of dietary lactobacillin on reproductive performance of sows and growth performance of suckling piglets[J]. Contemporary Animal Husbandry, 2024(7):35-36. (in Chinese)

[82]
CASADEI G, GRILLI E, PIVA A. Pediocin a modulates intestinal microflora metabolism in swine in vitro intestinal fermentations[J]. Journal of Animal Science, 2009, 87(6):2020-2028.

[83]
AMADO I R, FUCIÑOS C, FAJARDO P, et al. Pediocin SA-1:a selective bacteriocin for controlling Listeria monocytogenes in maize silages[J]. Journal of Dairy Science, 2016, 99(10):8070-8080.

[84]
LI Z Q, WANG M S, USMAN S, et al. Effects of nisin on bacterial community and fermentation profiles,in vitro rumen fermentation,microbiota,and methane emission of alfalfa silage[J]. Journal of the Science of Food and Agriculture, 2023, 103(13):6706-6718.

[85]
李子谦. 产细菌素乳酸菌影响饲草青贮及其瘤胃发酵的微生物机制[D]. 博士学位论文. 兰州: 兰州大学, 2023.

LI Z Q. Microbial mechanism of bacteriocin-producing lactic acid bacteria affecting forage silage and rumen fermentation[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2023. (in Chinese)

[86]
LI F H, DING Z T, ADESOGAN A T, et al. Effects of class Ⅱa bacteriocin-producing Lactobacillus species on fermentation quality and aerobic stability of alfalfa silage[J]. Animals, 2020, 10(9):1575.

文章导航

/