研究论文

围产期饲粮中添加过瘤胃葡萄糖对奶牛泌乳性能、瘤胃发酵参数及瘤胃微生物区系的影响

  • 史飞飞 , 1 ,
  • 马晓玉 1 ,
  • 叶亮亮 2 ,
  • 李飞 2 ,
  • 王玲 , 1, *
展开
  • 1 宁夏大学动物科技学院, 银川 750021
  • 2 河南兴豫源牧业科技有限公司, 焦作 454000
*王 玲,教授,硕士生导师,E-mail:

史飞飞(1991—),男,甘肃定西人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 陈 燕

收稿日期: 2025-12-29

  网络出版日期: 2026-08-13

基金资助

宁夏回族自治区重点研发项目(2023BCF01035)

Effects of Rumen-Protected Glucose Supplementation in Periparturient Diet on Lactation Performance, Rumen Fermentation Parameters and Rumen Microbiota of Dairy Cows

  • SHI Feifei , 1 ,
  • MA Xiaoyu 1 ,
  • YE Liangliang 2 ,
  • LI Fei 2 ,
  • WANG Ling , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Henan Xingyuyuan Animal Husbandry Technology Co., Ltd., Jiaozuo 454000, China
*professor, E-mail:

Received date: 2025-12-29

  Online published: 2026-08-13

摘要

本试验旨在研究围产期饲粮中添加过瘤胃葡萄糖(RPG)对荷斯坦奶牛泌乳性能、瘤胃发酵参数及瘤胃微生物区系的影响。选取胎次[(2.10±1.00)胎]、体况评分[(3.30±0.40)分]、上胎次产奶量[(35.27±2.14) kg/d]和预产期[(23±3) d]均接近的健康荷斯坦奶牛40头,随机分为2组,每组20头。对照组饲喂基础饲粮,试验组饲粮在基础饲粮的基础上添加300 g/d的RPG。试验期共6周,包括围产前期3周和围产后期3周。结果表明:1)与对照组相比,试验组奶牛围产后期干物质采食量、产奶量、乳脂率、乳蛋白率、乳糖率、体细胞数及乳尿素氮含量均无显著差异(P>0.05)。2)围产前期,与对照组相比,试验组瘤胃液pH与氨态氮(NH3-N)、总挥发性脂肪酸(TVFA)、乙酸、丙酸、异丁酸、丁酸、戊酸、异戊酸含量及乙丙比均无显著差异(P>0.05);围产后期,与对照组相比,试验组瘤胃液丙酸含量显著升高(P<0.05),乙丙比显著降低(P<0.05)。3)与对照组相比,试验组围产后期瘤胃微生物群落Ace指数、Chao1指数、Shannon指数和Simpson指数均极显著或显著降低(P<0.01或P<0.05),表明物种丰富度和多样性下降;非度量多维尺度(NMDS)分析进一步证实群落结构发生明显分离。4)门水平上,2组围产后期瘤胃微生物中拟杆菌门和厚壁菌门相对丰度均最高,与对照组相比,试验组厚壁菌门相对丰度极显著下降(P<0.01);属水平上,围产后期瘤胃微生物中普雷沃氏菌属和木聚糖杆菌属为2组共有优势菌属,与对照组相比,试验组普雷沃氏菌属相对丰度极显著升高(P<0.01),木聚糖杆菌属相对丰度极显著降低(P<0.01)。综上所述,围产期饲粮中添加300 g/d的RPG可优化围产后期奶牛的瘤胃发酵模式,提升丙酸合成能力,改变瘤胃微生物群落结构,改善糖异生底物供给,为缓解围产期奶牛能量负平衡提供了微生态层面的理论依据。

本文引用格式

史飞飞 , 马晓玉 , 叶亮亮 , 李飞 , 王玲 . 围产期饲粮中添加过瘤胃葡萄糖对奶牛泌乳性能、瘤胃发酵参数及瘤胃微生物区系的影响[J]. 动物营养学报, 2026 , 38(8) : 5914 -5925 . DOI: 10.12418/CJAN2026.474

Abstract

This experiment was conducted to investigate the effects of rumen-protected glucose (RPG) supplementation in periparturient diets on lactation performance, rumen fermentation parameters and rumen microbiota of Holstein dairy cows. Forty healthy Holstein cows with similar parity (2.10±1.00), body condition score (3.30±0.40), previous lactation milk yield [(35.27±2.14) kg/d] and expected calving date [(23±3) d] were selected and randomly divided into two groups of 20 cows in each group. Cows in the control group were fed a basal diet, and those in the experimental group were fed the basal diet supplemented with 300 g/d of RPG. The experimental period lasted 6 weeks, consisting of a 3-week prepartum period and a 3-week postpartum period. The results showed as follows: 1) compared with the control group, no significant differences were observed in dry matter intake, milk yield, milk fat percentage, milk protein percentage, lactose percentage, somatic cell count, or milk urea nitrogen content during the postpartum period in the experimental group (P>0.05). 2) During the prepartum period, no significant differences were detected in rumen fluid pH, contents of ammonia nitrogen (NH3-N), total volatile fatty acids (TVFA), acetate, propionate, isobutyrate, butyrate, valerate and isovalerate, and the acetate-to-propionate ratio between the two groups (P>0.05). During the postpartum period, compared with the control group, the rumen propionate content in the experimental group was significantly increased (P<0.05), and the acetate-to-propionate ratio was significantly decreased (P<0.05). 3) Compared with the control group, the Ace, Chao1, Shannon and Simpson indices of rumen microbial community in the experimental group during the postpartum period were significantly or extremely significantly decreased (P<0.05 or P<0.01), indicating a decline in species richness and diversity. Nonmetric multidimensional scaling (NMDS) analysis further confirmed a clear separation of community structure. 4) At the phylum level, Bacteroidetes and Firmicutes were the most abundant phyla in both groups during the postpartum period. Compared with the control group, the relative abundance of Firmicutes in the experimental group was extremely significantly decreased (P<0.01). At the genus level, Prevotella and Xylanibacter were the dominant genera in two groups during the postpartum period. The relative abundance of Prevotella in the experimental group was extremely significantly increased (P<0.01), while that of Xylanibacter was extremely significantly decreased (P<0.01). In summary, dietary supplementation of 300 g/d RPG during the periparturient period optimizes the rumen fermentation pattern, enhances propionate synthesis capacity, alters the rumen microbial community structure, and improves the supply of gluconeogenic substrates in postpartum dairy cows. These findings provide a microecological theoretical basis for alleviating negative energy balance in periparturient dairy cows.

围产期(产前3周至产后3周)是奶牛代谢应激关键期,该阶段干物质采食量下降与胎儿快速生长、泌乳启动导致的能量需求增加相矛盾,使奶牛普遍发生能量负平衡(negative energy balance,NEB)[1-2]。在能量负平衡状态下机体大量动员体脂,使非酯化脂肪酸和酮体水平升高,不仅抑制泌乳启动、降低产奶量,还会增加脂肪肝、酮病等代谢性疾病以及子宫炎、乳房炎等感染性疾病的发生风险,严重制约奶牛生产性能的发挥[3]
葡萄糖是乳糖合成和多种组织细胞代谢的关键底物,但反刍动物日粮中的可溶性糖和淀粉大多在瘤胃内被微生物迅速发酵为挥发性脂肪酸(VFA),小肠直接吸收的葡萄糖量有限。过瘤胃葡萄糖(rumen-protected glucose,RPG)通过脂肪包被等工艺避免在瘤胃中发酵,在小肠消化阶段释放并被吸收,可有效提高机体可利用葡萄糖供给,有利于缓解围产期能量不足[4]。已有研究表明,在日粮中添加适量RPG能够有效缓解泌乳早期奶牛能量负平衡并提高生产性能[5]。同时其对瘤胃发酵模式及微生物区系的潜在调控作用也逐渐受到关注。相关研究表明,基于RPG 87%的过瘤胃率推算,约13%的芯材会在瘤胃内部分降解释放,该过程可通过调控瘤胃微生物-宿主互作、改变瘤胃发酵模式参与机体能量代谢调节[6]。然而,目前关于RPG对围产期奶牛瘤胃微生物区系的影响仍缺乏系统性探讨。鉴于此,本研究在评估泌乳性能的基础上,系统解析RPG对围产期奶牛瘤胃发酵参数及微生物区系的影响特征,从微生态层面揭示其改善围产期能量负平衡的潜在机制,为RPG在围产期奶牛生产管理中的科学应用提供试验数据支撑。

1 材料与方法

1.1 试验材料

本试验所用RPG由湖南普菲克生物科技有限公司提供,为微囊包膜结构,芯材葡萄糖含量≥60%,外层采用30%~35%氢化棕榈油包被,水分含量≤10%,辅以少量成型辅料;产品参考过瘤胃率为87%,小肠有效释放率为93%。

1.2 试验设计及饲养管理

本次试验于2024年7月在河南兴豫源牧业科技有限公司的奶牛场(规模8 000头)进行,所有动物试验程序经宁夏大学动物伦理委员会批准(审批号:宁大动伦审〔2024〕0423号)。
选取胎次[(2.10±1.00)胎]、体况评分[(3.30±0.40)分]、上胎次产奶量[(35.27±2.14) kg/d]和预产期[(23±3) d]均接近的健康荷斯坦奶牛40头,随机分为2组,每组20头。对照组饲喂基础饲粮,试验组饲粮参考张国华等[7]的研究设计,在基础饲粮的基础上添加300 g/d的RPG。试验期共6周,包括围产前期3周和围产后期3周。
试验期间每日饲喂2次全混合日粮(TMR),每天清理1次剩料,奶牛自由采食和饮水,牛舍管理按牧场常规程序进行。围产前期、围产后期基础饲粮均依据 NRC(2001)奶牛营养需要量配制,分别匹配干奶期、泌乳早期(产奶量35 kg/d)营养需求标准,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of basal diets (DM basis)

项目
Items
围产前期
Prepartum period
围产后期
Postpartum period
原料 Ingredients
燕麦干草 Oat hay 11.55 2.48
苜蓿干草 Alfalfa hay 15.30
稻草 Rice straw 23.54
玉米青贮 Corn silage 32.49 27.12
豆粕 Soybean meal 5.52 11.18
棉籽粕 Cottonseed meal 3.55
玉米蛋白粉 Corn gluten meal 1.30
双低菜籽粕 Double-low rapeseed meal 7.80 4.23
玉米干酒糟及其可溶物 Corn DDGS 4.89 0.85
玉米粉 Ground corn 6.47 18.86
玉米压片 Steam-flaked corn 7.45
甜菜颗粒 Beet pulp pellets 3.61
整粒棉籽 Whole cottonseed 2.54
碳酸氢钠 NaHCO3 1.19
缓释尿素 Slow-release urea 0.28
脂肪粉 Fat powder 0.79
预混料 Premix1) 4.19 2.82
合计 Total 100.00 100.00
营养水平 Nutrient levels2)
泌乳净能 NEL/(MJ/kg) 6.19 6.95
粗蛋白质 CP 15.04 16.78
粗脂肪 EE 4.13 4.32
淀粉 Starch 12.35 24.68
中性洗涤纤维 NDF 43.61 28.96
酸性洗涤纤维 ADF 27.90 19.34

1)每千克围产前期预混料中含有 One kilogram of the prepartum period premix contained the following:VA 2 500 000 IU,VD 650 000 IU,VE 4 200 mg,Cu 4 125 mg,Zn 18 480 mg,Mn 12 720 mg,I 350 mg,Co 200 mg,Se 137 mg。每千克围产后期预混料中含有 One kilogram of the postpartum period premix contained the following:VA 1 500 000 IU,VD 500 000 IU,VE 2 100 mg,Cu 3 000 mg,Zn 12 315 mg,Mn 9 540 mg,I 250 mg,Co 120 mg,Se 80 mg。

2)泌乳净能根据NRC(2001)计算所得,其余均为实测值。NEL was calculated according to NRC (2001), and all other values were measured values.

1.3 样品采集及检测指标

1.3.1 饲粮营养水平测定

饲粮粗蛋白质含量参照GB/T 6432—2018的方法测定,粗脂肪含量参照GB/T 6433—2025,采用索氏提取装置测定。中性洗涤纤维及酸性洗涤纤维含量分别参照GB/T 20806—2022、NY/T 1459—2022并采用李泽民等[8]的聚酯网袋改进方法测定;淀粉含量参照GB 5009.9—2016,采用酸水解法测定。

1.3.2 泌乳性能测定

在奶牛产后第7、14和21天,统计每头奶牛TMR总投料量与总剩料量,计算每头奶牛的干物质采食量,同时记录每头奶牛产奶量;围产前期因胎儿压迫及临产应激导致采食量波动较大,未进行采食量统计。在产后第21天,按早∶中∶晚=4∶3∶3采集奶牛奶样50 mL,置于添加重铬酸钾防腐剂的奶样管中,摇匀后4 ℃保存,送至河南省奶牛生产性能测定(DHI)中心,采用CombiScope FTIR 600HP全自动乳成分体细胞分析仪(PerkinElmer,荷兰)测定乳脂率、乳蛋白率、乳糖率、体细胞数和乳尿素氮含量等乳成分指标。

1.3.3 瘤胃液采集与测定

分别在预产期前7天(围产前期)和产后第14天(围产后期)晨饲前2 h,从每组中按胎次、预产期及体况相近原则选取6头奶牛,经口腔采样器采集瘤胃液100 mL/头。采集到的瘤胃液立即测定pH,随后经4层纱布过滤,滤液-20 ℃保存,用于氨态氮(NH3-N)和VFA含量测定,计算总挥发性脂肪酸(TVFA)含量和乙丙比;此外,产后第14天采集的滤液取10 mL置于-80 ℃保存,用于瘤胃微生物16S rRNA测序分析。

1.3.3.1 瘤胃发酵参数的测定

瘤胃液pH采用便携式酸度计[PH-100,力辰科学仪器(浙江)有限公司]立即测定;NH3-N含量采用冯宗慈比色法测定;VFA含量采用GC-2014C气相色谱仪(岛津,日本)测定。

1.3.3.2 瘤胃微生物16S rRNA测序分析

瘤胃液微生物DNA抽提、PCR扩增和产物纯化委托广州基迪奥生物科技有限公司完成。采用1.0%琼脂糖凝胶电泳评估DNA片段完整性,NanoDrop 2000紫外可见分光光度计(Thermo Fisher Scientific,美国)测定DNA浓度与纯度;以16S rRNA基因的V3~V4区为目标片段,采用通用引物341F(5'-CCTACGGGNGGCWGCAG-3')和806R(5'-GGACTACHVGGGTATCTAAT-3')进行PCR扩增;扩增产物经AMPure XP Beads纯化后,采用Qubit 3.0荧光定量仪(Thermo Fisher Scientific,美国)定量,按Illumina NovaSeq 6000 测序平台PE250模式要求进行文库平衡并上机测序。
测序数据的生物信息学分析在QIIME2(version 2019.4)软件中进行:利用demux插件对原始序列解复用,cutadapt插件去除引物,DADA2插件完成序列质控、去噪、双端序列合并及嵌合体剔除,生成扩增子序列变异体(ASVs)特征序列;基于Greengenes数据库对ASVs特征序列进行比对,获得分类学注释信息;对抽平标准化后的ASVs表进行统计分析,获得各样本在门、属水平的微生物群落组成,并绘制群落组成柱状图。基于Bray-Curtis距离矩阵,采用R语言vegan程序包进行非度量多维尺度(NMDS)分析,评估不同样品间微生物群落结构的差异。

1.4 数据的统计与分析

奶牛泌乳性能和瘤胃发酵参数数据经Excel 2019整理后,采用SPSS 27.0统计软件的独立样本t检验进行组间比较;瘤胃微生物数据通过Omicsmart在线工具平台(https://www.omicsmart.com/tools)分析。试验结果以平均值和均值标准误(SEM)表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 围产期饲粮中添加RPG对奶牛围产后期干物质采食量和产奶量的影响

表2所示,与对照组相比,试验组奶牛产后第7、14、21天干物质采食量和产奶量无显著差异(P>0.05)。
表2 围产期饲粮中添加RPG对奶牛围产后期干物质采食量和产奶量的影响

Table 2 Effects of RPG supplementation in periparturient diet on dry matter intake and milk yield of dairy cows during postpartum period (n=20)

项目
Items
对照组
Control group
试验组
Experimental group
均值标准误
SEM
P
P-value
干物质采食量 DMI
第7天 Day 7 20.58 21.36 0.780 0.054
第14天 Day 14 23.55 24.11 0.563 0.732
第21天 Day 21 26.00 26.72 0.719 0.957
产奶量 Milk yield
第7天 Day 7 23.66 24.08 1.839 0.820
第14天 Day 14 35.65 36.27 1.461 0.673
第21天 Day 21 41.11 42.11 2.687 0.712

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 围产期饲粮中添加RPG对奶牛围产后期乳成分的影响

表3所示,与对照组相比,试验组乳脂率、乳蛋白率、乳糖率、体细胞数及乳尿素氮含量均无显著差异(P>0.05)。
表3 围产期饲粮中添加RPG对奶牛围产后期乳成分的影响

Table 3 Effects of RPG supplementation in periparturient diet on milk components of dairy cows during postpartum period

项目
Items
对照组
Control group
试验组
Experimental group
均值标准误
SEM
P
P-value
乳脂率 Milk fat percentage/% 4.16 4.19 0.116 0.789
乳蛋白率 Milk protein percentage/% 3.33 3.39 0.055 0.272
乳糖率 Lactose percentage/% 4.75 4.84 0.112 0.406
体细胞数 Somatic cell count/(×104个/mL) 16.49 16.00 0.525 0.354
乳尿素氮 Milk urea nitrogen/(mg/dL) 11.53 12.01 0.233 0.050

2.3 围产期饲粮中添加RPG对奶牛瘤胃发酵参数的影响

表4所示,围产前期,与对照组相比,试验组瘤胃液pH与NH3-N、TVFA、乙酸、丙酸、异丁酸、丁酸、戊酸、异戊酸含量及乙丙比均无显著差异(P>0.05);围产后期,与对照组相比,试验组瘤胃液pH与NH3-N、TVFA、乙酸、异丁酸、丁酸、戊酸、异戊酸含量无显著差异(P>0.05),但丙酸含量显著升高(P<0.05),乙丙比显著降低(P<0.05)。
表4 围产期饲粮中添加RPG对奶牛瘤胃发酵参数的影响

Table 4 Effects of RPG supplementation in periparturient diet on rumen fermentation parameters of dairy cows

项目
Items
围产前期 Prepartum period 围产后期 Postpartum period
对照组
Control
group
试验组
Experimental
group
均值标
准误
SEM
P
P-value
对照组
Control
group
试验组
Experimental
group
均值标
准误
SEM
P
P-value
pH 6.44 6.34 0.129 0.470 6.30 6.23 0.128 0.580
氨态氮 NH3-N/(mg/dL) 4.94 5.79 1.088 0.451 4.94 6.91 1.378 0.183
总挥发性脂肪酸
TVFA/(mmol/L)
83.26 84.67 10.437 0.894 87.45 90.94 6.309 0.585
乙酸 Acetate/(mmol/L) 50.04 52.42 5.572 0.674 50.77 49.35 3.924 0.723
丙酸 Propionate/(mmol/L) 21.25 20.09 2.960 0.699 24.25b 29.77a 2.088 0.015
异丁酸
Isobutyrate/(mmol/L)
2.82 1.41 1.379 0.181 1.20 0.87 1.307 0.832
丁酸 Butyrate/(mmol/L) 7.66 9.57 1.743 0.425 9.68 9.40 0.178 0.074
戊酸 Valerate/(mmol/L) 0.39 0.20 0.114 0.097 0.28 0.18 0.097 0.315
异戊酸
Isovalerate/(mmol/L)
1.09 0.99 0.219 0.657 1.27 1.37 0.161 0.532
乙丙比 Acetate/propionate 2.35 2.61 0.013 0.600 2.09a 1.66b 0.147 0.011

2.4 围产期饲粮中添加RPG对奶牛围产后期瘤胃微生物区系的影响

2.4.1 瘤胃微生物群落ASVs组成差异
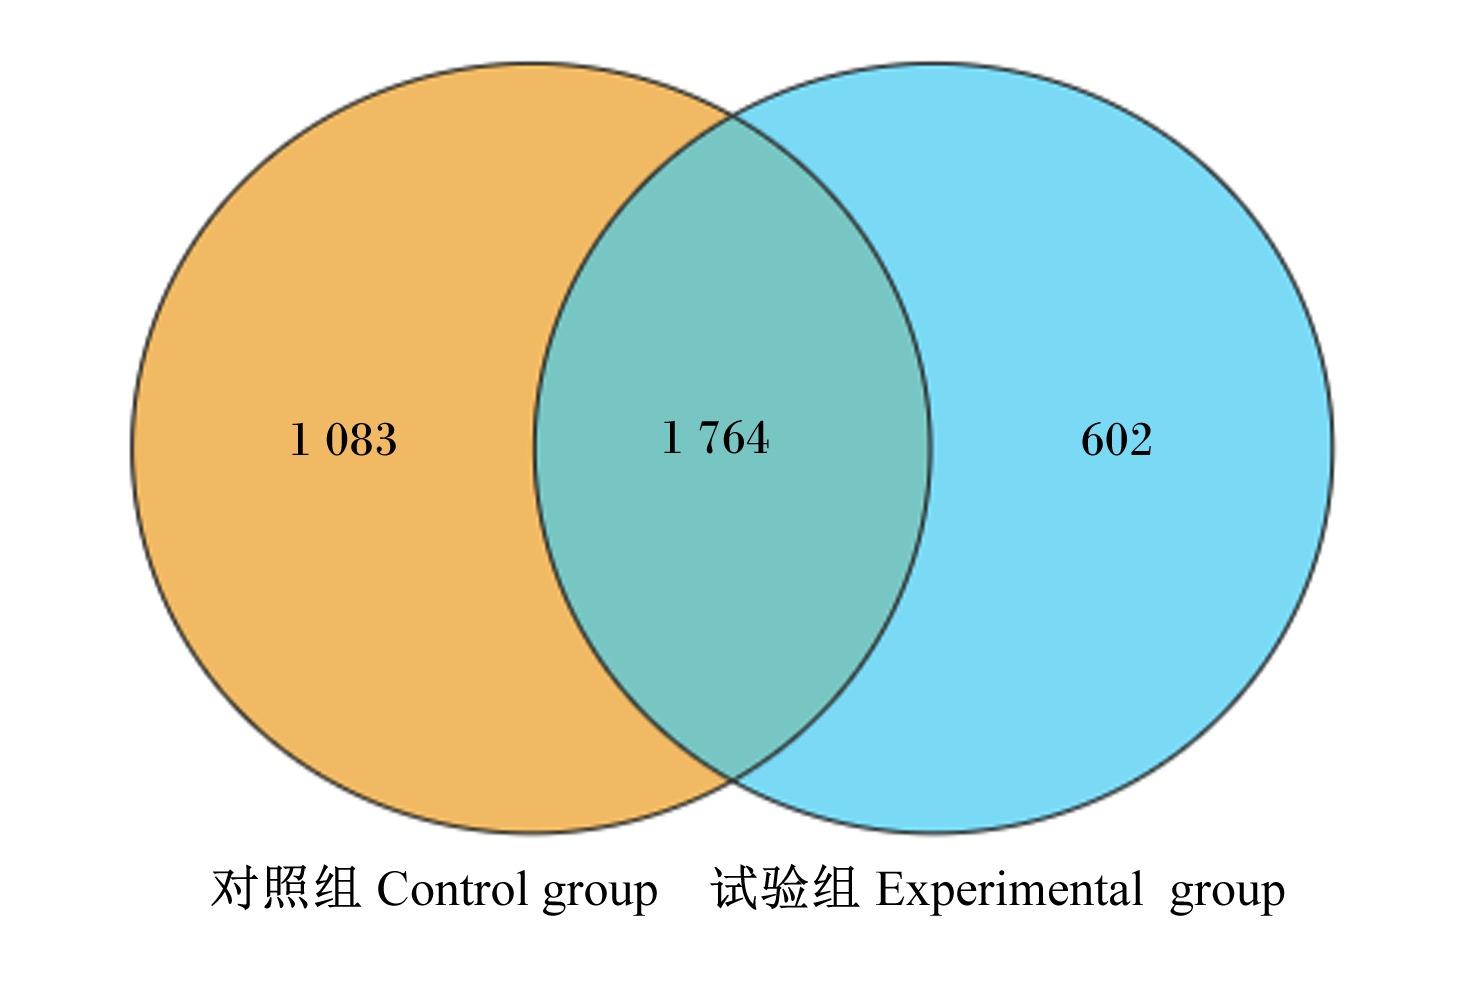
经质控并去除嵌合体后,瘤胃液样本有效序列共获得3 449个ASVs(图1),其中2组共有ASVs数量为1 764个,对照组特有1 083个(占ASVs总数的31.4%),试验组特有602个(占ASVs总数的17.5%)。
图1 ASVs韦恩图

Fig.1 Venn diagram of ASVs

2.4.2 瘤胃微生物群落α多样性

表5所示,与对照组相比,试验组瘤胃微生物群落Ace指数、Chao1指数、Shannon指数均极显著降低(P<0.01),Simpson指数显著降低(P<0.05),表明饲粮中添加RPG显著降低了围产后期奶牛瘤胃微生物群落的物种丰富度和多样性。
表5 围产期饲粮中添加RPG对奶牛围产后期瘤胃微生物群落α多样性的影响

Table 5 Effects of RPG supplementation in periparturient diet on alpha diversity of rumen microbial community of dairy cows during postpartum period

项目
Items
对照组
Control group
试验组
Experimental group
均值标准误
SEM
PP-value
Ace指数 Ace index 3 441.10A 2 836.59B 207.268 <0.001
Chao1指数 Chao1 index 3 288.92A 2 697.54B 207.628 0.001
Simpson指数 Simpson index 0.98a 0.95b 0.011 0.012
Shannon指数 Shannon index 8.54A 6.83B 0.595 0.001

2.4.3 瘤胃微生物群落β多样性

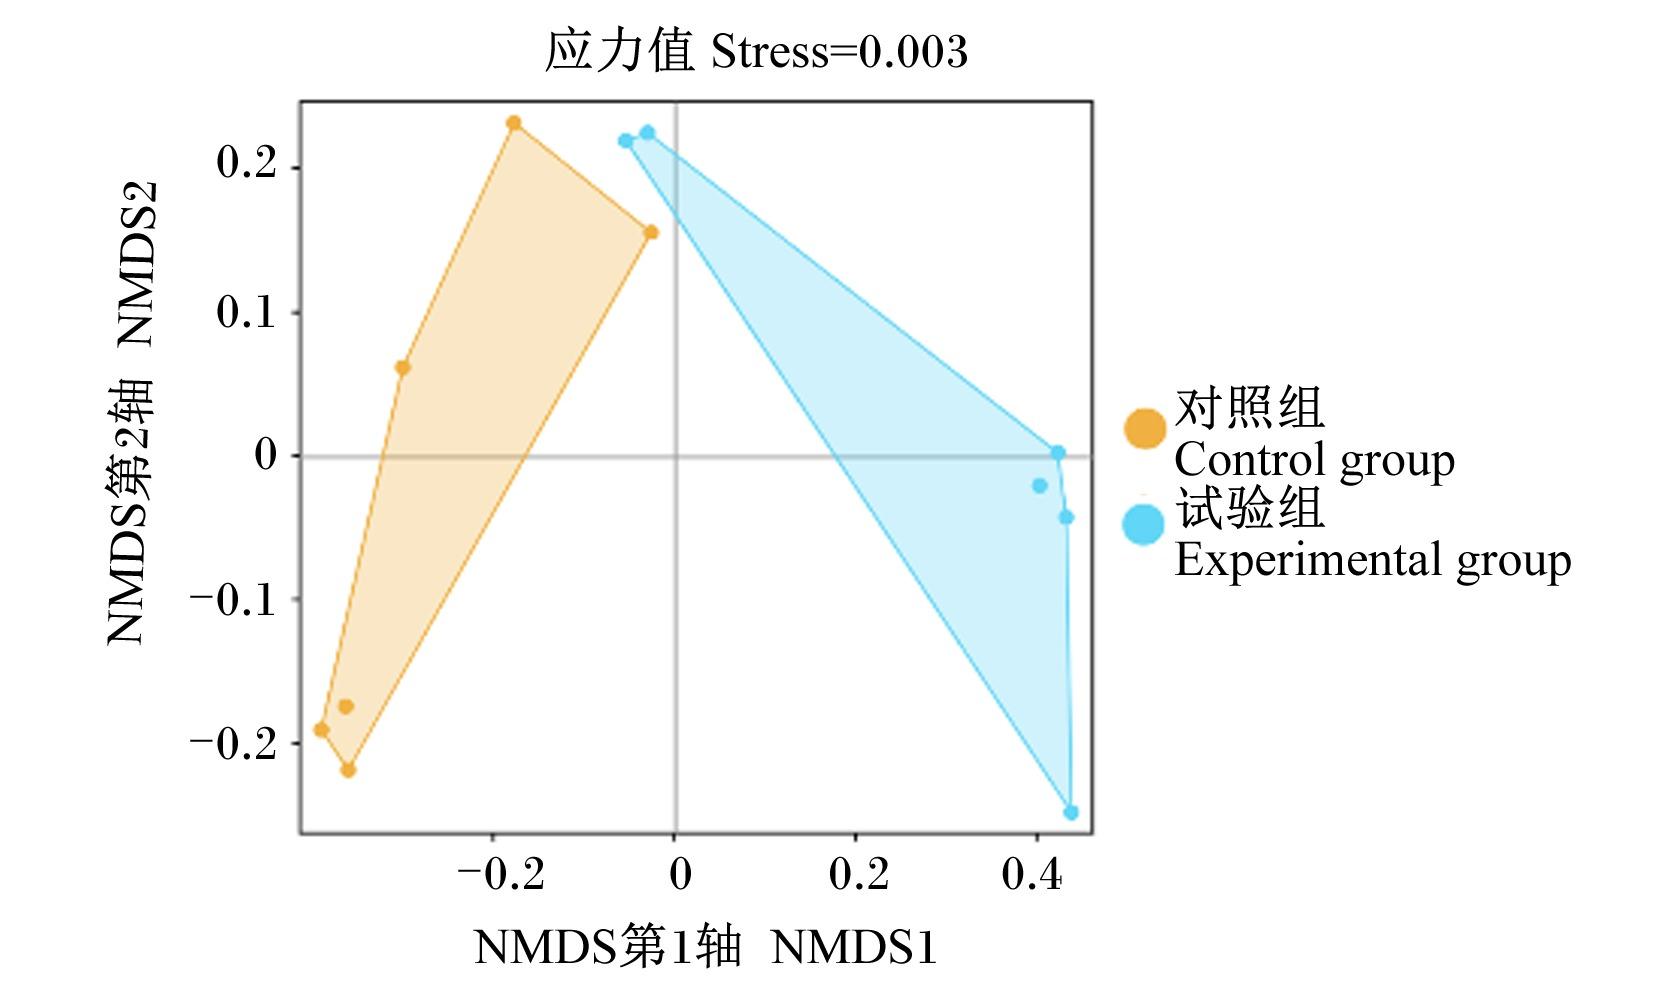
基于Bray-Curtis距离的NMDS分析(图2)显示,对照组与试验组的样本点在二维空间中形成各自独立的聚集区域,应力值(stress)=0.003,表明2组瘤胃微生物群落结构存在显著差异,饲粮中添加RPG显著改变了围产期奶牛瘤胃微生物群落结构。
图2 基于Bray-Curtis距离的NMDS分析

Fig.2 NMDS analysis based on Bray-Curtis distance

2.4.4 瘤胃微生物群落在门水平和属水平的相对丰度

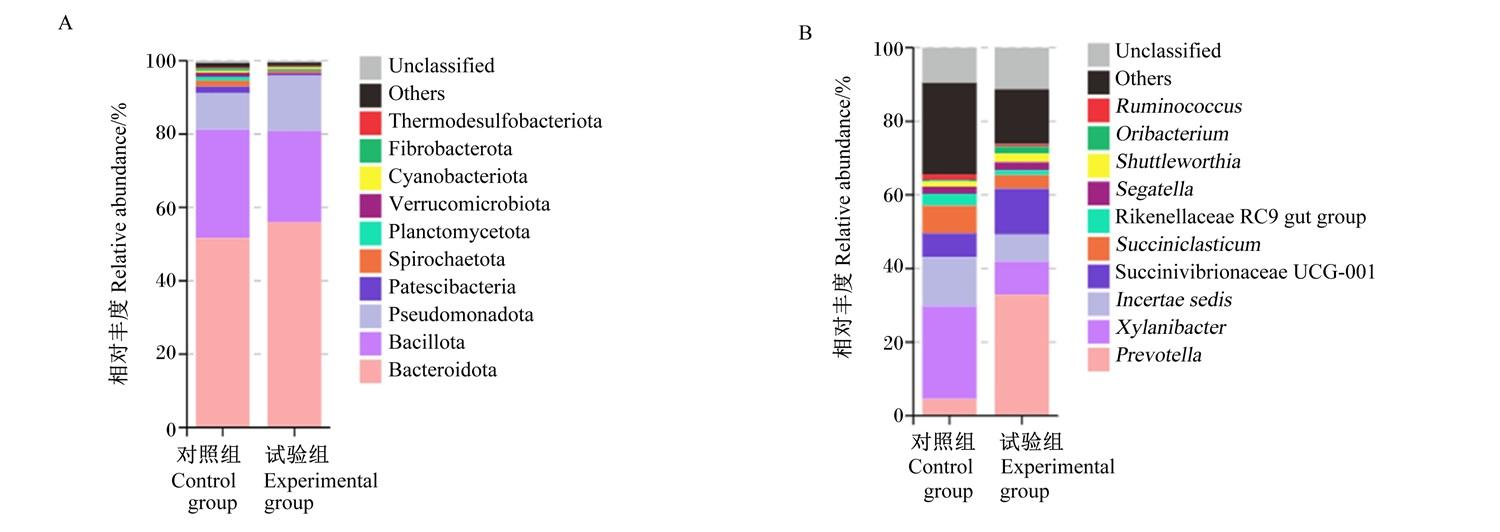
图3-A所示,门水平上,奶牛瘤胃微生物群落中拟杆菌门、厚壁菌门和变形菌门为2组的优势菌门,三者的相对丰度总和在90%以上。如表6所示,与对照组相比,试验组厚壁菌门、髌骨菌门、螺旋体门、疣微菌门和纤维杆菌门相对丰度极显著或显著降低(P<0.01或P<0.05),拟杆菌门、变形菌门相对丰度在数值上有所升高(P>0.05)。
图3 围产期饲粮中添加RPG对奶牛围产后期瘤胃微生物群落在门水平和属水平的相对丰度的影响

A:门水平 phylum level;B:属水平 genus level。

Bacteroidota:拟杆菌门;Bacillota:厚壁菌门;Pseudomonadota:变形菌门;Patescibacteria:髌骨菌门;Spirochaetota:螺旋体门;Planctomycetota:浮霉菌门;Verrucomicrobiota:疣微菌门;Cyanobacteriota:蓝藻门;Fibrobacterota:纤维杆菌门;Thermodesulfobacteriota:热脱硫杆菌门;Prevotella:普雷沃氏菌属;Xylanibacter:木聚糖杆菌属;Incertae sedis:未定地位类群;Succinivibrionaceae UCG-001:琥珀酸弧菌科UCG-001;Succiniclasticum:解琥珀酸菌属;Rikenellaceae RC9 gut group:理研菌科RC9肠道群;Segatella:塞加特菌属;Shuttleworthia:舒特沃斯氏菌属;Oribacterium:口腔杆菌属;Ruminococcus:瘤胃球菌属;Others:其他;Unclassified:未分类。

Fig.3 Effects of RPG supplementation in periparturient diet on relative abundance of rumen microbial community at phylum and genus levels of dairy cows during postpartum period

表6 围产期饲粮中添加RPG对奶牛围产后期瘤胃微生物群落在门水平上相对丰度的影响(前10)

Table 6 Effects of RPG supplementation in periparturient diet on relative abundance of rumen microbial community at phylum level of dairy cows during postpartum period (top 10)

项目
Items
对照组
Control group
试验组
Experimental group
均值标准误
SEM
P
P-value
拟杆菌门 Bacteroidota 51.64 55.98 3.465 0.239
厚壁菌门 Bacillota 29.57A 24.87B 0.944 <0.001
变形菌门 Pseudomonadota 9.95 15.10 3.921 0.218
髌骨菌门 Patescibacteria 1.79a 0.62b 0.405 0.016
螺旋体门 Spirochaetota 1.58a 0.61b 0.406 0.037
浮霉菌门 Planctomycetota 1.08 0.36 0.489 0.172
疣微菌门 Verrucomicrobiota 1.11a 0.18b 0.287 0.023
蓝藻门 Cyanobacteriota 0.49 0.44 0.110 0.699
纤维杆菌门 Fibrobacterota 0.66a 0.16b 0.181 0.021
热脱硫杆菌门 Thermodesulfobacteriota 0.31 0.27 0.066 0.545
图3-B所示,属水平上,普雷沃氏菌属和木聚糖杆菌属为2组的优势菌属。如表7所示,与对照组相比,试验组普雷沃氏菌属相对丰度极显著升高(P<0.01),木聚糖杆菌属、解琥珀酸菌属、理研菌科RC9肠道群、瘤胃球菌属相对丰度极显著降低(P<0.01),未定地位类群相对丰度显著降低(P<0.05)。
表7 围产期饲粮中添加RPG对奶牛围产后期瘤胃微生物群落在属水平上相对丰度的影响(前10)

Table 7 Effects of RPG supplementation in periparturient diet on relative abundance of rumen microbial community at genus level of dairy cows during postpartum period (top 10)%

项目
Items
对照组
Control group
试验组
Experimental group
均值标准误
SEM
P
P-value
普雷沃氏菌属 Prevotella 4.50B 32.87A 4.931 <0.001
木聚糖杆菌属 Xylanibacter 25.27A 9.06B 3.794 0.002
未定地位类群 Incertae sedis 13.39a 7.37b 1.711 0.012
琥珀酸弧菌科UCG-001 Succinivibrionaceae UCG-001 6.40 12.35 3.888 0.157
解琥珀酸菌属 Succiniclasticum 7.52A 3.70B 1.021 0.004
理研菌科RC9肠道群 Rikenellaceae RC9 gut group 3.20A 1.29B 0.579 0.008
塞加特菌属 Segatella 1.95 2.23 1.103 0.805
舒特沃斯氏菌属 Shuttleworthia 1.31 2.32 0.767 0.214
口腔杆菌属 Oribacterium 0.43 1.90 0.796 0.123
瘤胃球菌属 Ruminococcus 1.63A 0.65B 0.168 <0.001

3 讨论

需要指出的是,本试验的检测指标主要关注瘤胃发酵参数和泌乳性能,未检测血液生化指标[如葡萄糖、非酯化脂肪酸(NEFA)、β-羟基丁酸(BHBA)等]及小肠吸收相关指标,这是试验设计本身的缺陷。后续研究可纳入上述指标,从而更全面解析RPG在围产期奶牛能量代谢中的调控机制。

3.1 围产期饲粮中添加RPG对奶牛围产后期干物质采食量和产奶量的影响

RPG对奶牛的调控效果主要取决其于过瘤胃率、小肠释放率、添加量,以及奶牛的产奶潜力、产前体况、饲粮营养水平(特别是淀粉含量及其瘤胃降解度、降解速率)等。本试验围产前期、围产后期基础饲粮淀粉含量分别为12.35%、24.68%,均属于中等淀粉含量饲粮,其含有的可发酵碳水化合物供给能够为瘤胃微生物提供充足的碳源。基于此背景,RPG在瘤胃内13%的芯材降解释放的葡萄糖相对于饲粮淀粉发酵提供的碳源占比较小,这可能是本试验未观察到瘤胃代谢剧烈变化的主要原因,也符合优质过瘤胃保护产品对瘤胃微生物区系及代谢无显著负面影响的特性。因此,在分析RPG对围产期奶牛的调控效应时,必须结合饲粮淀粉含量背景进行综合研判,不宜简单比较添加RPG有无效果。
产奶量是反映奶牛饲粮营养水平与利用效率的综合指标,受干物质采食量、能量摄入水平、生理阶段、饲养管理等多种因素交互影响[9]。已有研究表明,饲粮中添加300 g/d的RPG可提高泌乳奶牛产奶量[7],十二指肠灌注葡萄糖模拟RPG吸收的研究也验证了增加小肠可吸收葡萄糖对乳合成有促进作用[10]。本试验中,与对照组相比,饲粮中添加RPG使奶牛产后第7、14、21天产奶量在数值上分别增加0.42、0.62、1.00 kg,但未达到显著水平;且饲粮中添加RPG对乳脂率、乳蛋白率、乳糖率、体细胞数等乳成分指标无显著影响,说明在本试验条件下,饲粮中添加300 g/d的RPG对围产期奶牛泌乳性能的改善作用有限。
结合饲粮淀粉含量分析,本试验围产后期基础饲粮淀粉含量达24.68%,中等偏高的淀粉供给为奶牛提供了充足的可发酵碳水化合物,一定程度上弥补了围产期能量不足,可能掩盖了RPG的能量补充效应[11];同时,基础饲粮中玉米粉、玉米压片等淀粉类原料的瘤胃降解速率存在差异,与RPG的小肠葡萄糖释放形成叠加效应,导致RPG对泌乳性能的调控未呈现显著差异。

3.2 围产期饲粮中添加RPG对奶牛围产后期乳成分的影响

乳脂、乳蛋白及乳糖含量是评估乳品质的关键指标[12],乳尿素氮含量则反映奶牛对饲粮氮的利用率[13],而体细胞数的高低是评价乳房健康和牛奶品质的重要指标[14]。Sauls-Hiesterman等[15]研究表明,奶牛饲粮中添加不同剂量的RPG对乳脂率、乳蛋白率、乳糖率及体细胞数均无显著影响,但乳尿素氮随RPG剂量增加呈线性升高趋势,王亚品[16]对乳成分研究表明,添加不同剂量RPG会使乳蛋白率显著降低,对乳脂率和乳糖率则无显著影响。与之相反,Rigout等[10]通过向泌乳奶牛十二指肠灌注葡萄糖模拟RPG供给,发现随着输注剂量递增,乳脂率、乳蛋白率及乳糖率呈现显著线性降低,该现象可能与葡萄糖补充途径、饲粮本底组成及饲养条件相关。本试验中,与对照组相比,饲粮中添加RPG对奶牛体细胞数、乳脂率、乳糖率、乳蛋白率及乳尿素氮含量无显著影响,说明在本试验条件下,饲粮中添加RPG对机体整体葡萄糖代谢及乳脂合成和乳糖合成的调节作用不明显,这与Sauls-Hiesterman等[15]和王亚品[16]关于乳脂和乳糖含量变化不明显的结果基本一致。Rulquin等[17]研究发现,由于RPG提供的额外可利用葡萄糖节约了生糖氨基酸,使更多氨基酸用于乳蛋白合成,饲粮中添加RPG会使乳蛋白率提高。而本试验中,饲粮中添加RPG后乳蛋白率在数值上略有提高,但未达到显著水平,这可能与饲粮中RPG的添加剂量有关,具体有待进一步研究证实。本试验中,饲粮中添加RPG后乳尿素氮含量虽略有上升但仍处于8~16 mg/dL的适宜范围[18],表明2组奶牛饲粮氮供给与氮利用效率总体处于平衡状态。

3.3 围产期饲粮中添加RPG对奶牛瘤胃发酵参数的影响

瘤胃发酵参数是反映瘤胃内环境稳态和发酵效率的核心指标,优化瘤胃发酵模式可促进营养物质消化,缓解围产期奶牛能量负平衡[19]。本试验中,饲粮中添加RPG对围产前期瘤胃发酵参数无显著影响,围产后期显著提高丙酸含量并降低乙丙比,且整个试验期未对瘤胃液pH及NH3-N、TVFA含量产生显著影响,表明RPG对围产期奶牛瘤胃发酵的调控具有阶段特异性,且未破坏瘤胃内环境稳态。
瘤胃液pH维持在5.5~7.5的正常范围[20],说明饲粮中300 g/d的RPG添加剂量未对瘤胃酸碱平衡产生负面影响,这与龙栋磊[21]的研究结果一致。奶牛瘤胃液NH3-N含量反映瘤胃氮代谢状态,试验组NH3-N含量在数值上高于对照组,可能是因为RPG在瘤胃内部分降解释放的葡萄糖为微生物提供了可发酵碳水化合物,促进氮向微生物蛋白合成方向转化,提高了瘤胃氮利用效率[22-23]。VFA是奶牛主要的能量来源,占代谢能的60%~70%[24],围产后期丙酸含量显著升高、乙丙比降低,表明瘤胃发酵模式向“丙酸型”偏移,这与基础饲粮淀粉含量密切相关:围产后期淀粉含量(24.68%)显著高于围产前期(12.35%),与RPG瘤胃内部分降解的葡萄糖形成协同作用,为产丙酸菌提供了充足底物,从而促进丙酸合成[25]。丙酸是反刍动物糖异生的主要底物,可通过肝脏转化为葡萄糖,为乳糖合成和机体代谢供能,有利于缓解围产期奶牛能量负平衡[26]
本试验中,RPG虽有13%的芯材在瘤胃内降解,但未观察到瘤胃发酵参数的剧烈变化,这与常规过瘤胃保护产品的特性一致,优质过瘤胃保护产品对瘤胃微生物代谢无显著负面影响,仅通过少量底物释放定向调控发酵模式;同时,围产期奶牛瘤胃微生物对碳源变化的适应性,也使得瘤胃发酵未出现显著波动。

3.4 围产期饲粮中添加RPG对奶牛围产后期瘤胃微生物区系的影响

瘤胃微生物群落是调控瘤胃发酵模式的核心,其结构组成与多样性直接影响营养物质消化利用和机体能量代谢[27]。本试验中,与对照组相比,试验组围产后期瘤胃微生物群落的Ace、Chao1、Shannon、Simpson指数均极显著或显著降低,NMDS分析显示2组群落结构明显分离,表明饲粮添加RPG改变了围产后期奶牛瘤胃微生物群落结构,降低了物种丰富度和多样性。这一变化与饲粮碳源供给特征密切相关:RPG在瘤胃内部分降解释放的葡萄糖为可发酵碳水化合物,与基础饲粮中的淀粉共同为普雷沃氏菌属等产丙酸菌提供了生长优势,使其快速增殖并成为优势种群,挤占了木聚糖杆菌属、瘤胃球菌属等纤维降解菌的生态位[28],导致菌群结构趋向单一,物种丰富度和多样性降低。
门水平上,拟杆菌门和厚壁菌门为2组共有优势菌门,这与反刍动物瘤胃典型菌门构成一致[29]。拟杆菌门主要参与非纤维性碳水化合物降解,发酵产物以丙酸为主[30];厚壁菌门主要降解结构性纤维,产生乙酸和丁酸[31]。与对照组相比,试验组拟杆菌门相对丰度在数值上升高、厚壁菌门极显著降低,与围产后期瘤胃丙酸含量升高的结果相呼应,结合基础饲粮较高淀粉含量的特性,RPG瘤胃内降解的葡萄糖进一步强化了拟杆菌门对非纤维性碳水化合物的利用优势,推动瘤胃发酵向丙酸合成方向转变。
属水平上,普雷沃氏菌属为2组共有优势菌属,且试验组其相对丰度极显著高于对照组,该菌属能高效利用淀粉、葡萄糖等碳水化合物,发酵产物以丙酸为主[32],与本试验中丙酸含量显著升高的结果高度契合,表明普雷沃氏菌属是介导RPG调控瘤胃丙酸合成的关键功能菌属[33-35]。而解琥珀酸菌属虽也以产丙酸为主要代谢特征[36],但试验组其相对丰度极显著低于对照组,推测其生长繁殖受饲粮较高淀粉与葡萄糖协同作用的抑制,或与普雷沃氏菌属存在营养竞争,表明RPG调控丙酸合成的核心菌群为普雷沃氏菌属,而非解琥珀酸菌属。
此外,木聚糖杆菌属、瘤胃球菌属等纤维降解菌相对丰度极显著降低,与厚壁菌门的变化趋势一致,这是因为易发酵碳水化合物的充足供给使微生物更倾向于利用易降解底物,降低了对结构性碳水化合物的降解能力,这也提示在实际生产中,添加RPG时需合理搭配饲粮纤维原料,维持瘤胃微生物的纤维降解能力。
奶牛对RPG的响应受多因素调控,后续研究可结合不同淀粉水平、淀粉瘤胃降解度、RPG添加量开展梯度试验,明确RPG在不同饲粮条件下的最佳应用剂量;同时补充血液生化、小肠吸收效率等指标检测,全面解析RPG对围产期奶牛能量代谢的调控机制,为其精准应用提供更全面的理论依据。

4 结论

在本试验条件下,围产期荷斯坦奶牛饲粮中添加300 g/d的RPG,结合基础饲粮围产前期、围产后期分别为12.35%、24.68%的淀粉含量,未对奶牛围产后期泌乳性能产生显著影响,但可通过调控瘤胃微生物区系,显著优化围产后期瘤胃发酵模式,提高丙酸含量、降低乙丙比,促进拟杆菌门和普雷沃氏菌属等产丙酸微生物群落的增殖,改善糖异生底物供给,为缓解围产期奶牛能量负平衡提供微生态层面的支撑。
[1]
闫国骏, 李福岗, 刘泽锋, 等. 叶酸和甜菜碱对围产期奶牛泌乳性能、乳脂肪酸组成、养分消化和瘤胃发酵的影响[J]. 动物营养学报, 2024, 36(2):995-1002.

YAN G J, LI F G, LIU Z F, et al. Effects of folic acid and betaine on lactation performance,milk fatty acid composition,nutrient digestion and rumen fermentation of dairy cows during perinatal period[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):995-1002. (in Chinese)

[2]
杨松桦, 张航宇, 李飞, 等. 围产期奶牛的免疫抑制及营养调控[J]. 动物营养学报, 2025, 37(3):1436-1447.

YANG S H, ZHANG H Y, LI F, et al. Immune suppression and nutritional regulation in periparturient dairy cows[J]. Chinese Journal of Animal Nutrition, 2025, 37(3):1436-1447. (in Chinese)

[3]
张帆, 唐湘方, 熊本海. 围产期奶牛酮病发病规律及防控措施研究进展[J]. 动物营养学报, 2025, 37(3):1410-1423.

ZHANG F, TANG X F, XIONG B H. Research progress on regularity and control measures of ketosis in perinatal dairy cows[J]. Chinese Journal of Animal Nutrition, 2025, 37(3):1410-1423. (in Chinese)

[4]
WANG Y P, CAI M, HUA D K, et al. Metabolomics reveals effects of rumen-protected glucose on metabolism of dairy cows in early lactation[J]. Animal Feed Science and Technology, 2020, 269:114620.

[5]
邵立圣. 过瘤胃葡萄糖对围产期奶牛生产性能、血液生化指标及胎儿生长发育的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2023.

SHAO L S. The effects of supplementation with rumen-protected glucose on production performance,blood indexes,and fetal growth development in periparturient dairy cows[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2023. (in Chinese)

[6]
ZHANG X L, LI X P, WU J, et al. Rumen-protected glucose supplementation in transition dairy cows shifts fermentation patterns and enhances mucosal immunity[J]. Animal Nutrition, 2021, 7(4):1182-1188.

[7]
张国华, 李强, 金振华, 等. 过瘤胃葡萄糖对泌乳早期奶牛体况、血清生化指标、产奶量、乳成分的影响[J]. 中国饲料, 2023(15):94-98.

ZHANG G H, LI Q, JIN Z H, et al. Effects of rumen-protected glucose on body condition,serum biochemical indices,milk yield and milk composition of early-lactation dairy cows[J]. China Feed, 2023(15):94-98. (in Chinese)

[8]
李泽民, 张晨, 张桂国, 等. 应用聚酯网袋测定饲料中中性洗涤纤维和酸性洗涤纤维含量的可行性研究[J]. 动物营养学报, 2020, 32(12):5967-5975.

LI Z M, ZHANG C, ZHANG G G, et al. Feasibility study of determination of neutral detergent fiber and acid detergent fiber contents in feed using polyester mesh bag[J]. Chinese Journal of Animal Nutrition, 2020, 32(12):5967-5975. (in Chinese)

[9]
顾彩红. 浅析影响中国荷斯坦奶牛产奶量的因素[J]. 畜禽业, 2022, 33(3):71-73.

GU C H. Analysis of factors affecting milk yield of Chinese Holstein dairy cows[J]. Livestock and Poultry Industry, 2022, 33(3):71-73. (in Chinese)

[10]
RIGOUT S, LEMOSQUET S, VAN EYS J E, et al. Duodenal glucose increases glucose fluxes and lactose synthesis in grass silage-fed dairy cows[J]. Journal of Dairy Science, 2002, 85(3):595-606.

[11]
龙栋磊, 文江南, 王荣, 等. 围产期奶牛能量负平衡的生理变化及关键缓解措施[J]. 中国奶牛, 2018(2):4-7.

LONG D L, WEN J N, WANG R, et al. The physiological changes of periparturient dairy cows and the key measures to alleviate negative energy balance[J]. China Dairy Cattle, 2018(2):4-7. (in Chinese)

[12]
ANTANAITIS R, RUTKAUSKAS A, TELEVI? IUS M, et al. In-line monitoring of milk lactose for evaluating metabolic and physiological status in early-lactation dairy cows[J]. Life, 2025, 15(8):1204.

[13]
李宏伟, 田兰, 任亚琼, 等. 低蛋白日粮对奶牛产乳效率、乳品质及碳、氮排放的影响[J]. 饲料研究, 2024, 47(8):27-31.

LI H W, TIAN L, REN Y Q, et al. Effects of low protein diet on milk production efficiency,milk quality,and carbon and nitrogen emission of dairy cows[J]. Feed Research, 2024, 47(8):27-31. (in Chinese)

[14]
LI N, RICHOUX R, BOUTINAUD M, et al. Role of somatic cells on dairy processes and products:a review[J]. Dairy Science & Technology, 2014, 94(6):517-538.

[15]
SAULS-HIESTERMAN J A, BANUELOS S, ATANASOV B, et al. Physiologic responses to feeding rumen-protected glucose to lactating dairy cows[J]. Animal Reproduction Science, 2020, 216:106346.

[16]
王亚品. 过瘤胃葡萄糖对泌乳早期奶牛胃肠道功能及机体代谢的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2021.

WANG Y P. Effects of different doses of rumen-protected glucose on gastrointestinal function and body metabolism of early lactation dairy cows[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2021. (in Chinese)

[17]
RULQUIN H, RIGOUT S, LEMOSQUET S, et al. Infusion of glucose directs circulating amino acids to the mammary gland in well-fed dairy cows[J]. Journal of Dairy Science, 2004, 87(2):340-349.

[18]
ZHAO X W, ZANG C J, ZHAO S G, et al. Assessing milk urea nitrogen as an indicator of protein nutrition and nitrogen utilization efficiency:a Meta-analysis[J]. Journal of Dairy Science, 2025, 108(5):4851-4862.

[19]
WANG F F, MAO Y X, LI C L, et al. Sijunzi San alleviates the negative energy balance in postpartum dairy cows by regulating rumen fermentation capacity[J]. Frontiers in Veterinary Science, 2024, 11:1512081.

[20]
MIAO J J, WANG L Z. Rumen acidosis in ruminants:a review of the effects of high-concentrate diets and the potential modulatory role of rumen foam[J]. Frontiers in Veterinary Science, 2025, 12:1595615.

[21]
龙栋磊. 过瘤胃葡萄糖对围产期奶牛生殖激素分泌及生产性能的影响[D]. 硕士学位论文. 长沙: 湖南农业大学, 2018.

LONG D L. Effects of rumen-protected glucose on reproductive hormones secretion and performance during transition period in dairy cows[D]. Master’s Thesis. Changsha: Hunan Agricultural University, 2018. (in Chinese)

[22]
SHEN J S, SONG L J, SUN H Z, et al. Effects of corn and soybean meal types on rumen fermentation,nitrogen metabolism and productivity in dairy cows[J]. Asian-Australasian Journal of Animal Sciences, 2015, 28(3):351-359.

[23]
孙一权, 张振斌, 刘洋, 等. 反刍动物瘤胃氮素利用微生物及其生产应用的研究概况[J]. 饲料工业, 2024, 45(16):9-15,31.

SUN Y Q, ZHANG Z B, LIU Y, et al. Overview of research on rumen nitrogen-utilizing microorganisms of ruminants and their production applications[J]. Feed Industry, 2024, 45(16):9-15,31. (in Chinese)

[24]
SUTTON J D, DHANOA M S, MORANT S V, et al. Rates of production of acetate,propionate,and butyrate in the rumen of lactating dairy cows given normal and low-roughage diets[J]. Journal of Dairy Science, 2003, 86(11):3620-3633.

[25]
NASROLLAHI S M, ZALI A, GHORBANI G R, et al. Effects of increasing diet fermentability on intake,digestion,rumen fermentation,blood metabolites and milk production of heat-stressed dairy cows[J]. Animal, 2019, 13(11):2527-2535.

[26]
CHEN H, WANG C J, HUASAI S, et al. Effects of dietary forage to concentrate ratio on nutrient digestibility,ruminal fermentation and rumen bacterial composition in angus cows[J]. Scientific Reports, 2021, 11(1):17023.

[27]
DU W J, HU Y, XU W J, et al. Editorial:crosslinking of feed nutrients,microbiome and production in ruminants[J]. Frontiers in Veterinary Science, 2025, 12:1610490.

[28]
WANG Y P, NAN X M, ZHAO Y G, et al. Ruminal degradation of rumen-protected glucose influences the ruminal microbiota and metabolites in early-lactation dairy cows[J]. Applied and Environmental Microbiology, 2021, 87(2):e01908-20.

[29]
XIN J W, CHAI Z X, ZHANG C F, et al. Comparing the microbial community in four stomach of dairy cattle,yellow cattle and three yak herds in Qinghai-Tibetan plateau[J]. Frontiers in Microbiology, 2019, 10:1547.

[30]
THOMAS F, HEHEMANN J H, REBUFFET E, et al. Environmental and gut Bacteroidetes:the food connection[J]. Frontiers in Microbiology, 2011, 2:93.

[31]
MCCARTHY C S, DOOLEY B C, BRANSTAD E H, et al. Energetic metabolism,milk production,and inflammatory response of transition dairy cows fed rumen-protected glucose[J]. Journal of Dairy Science, 2020, 103(8):7451-7461.

[32]
SHINKAI T, TAKIZAWA S, ENISHI O, et al. Characteristics of rumen microbiota and Prevotella isolates found in high propionate and low methane-producing dairy cows[J]. Frontiers in Microbiology, 2024, 15:1404991.

[33]
XUE M Y, SUN H Z, WU X H, et al. Assessment of rumen bacteria in dairy cows with varied milk protein yield[J]. Journal of Dairy Science, 2019, 102(6):5031-5041.

[34]
ZENG H B, GUO C Z, SUN D M, et al. The ruminal microbiome and metabolome alterations associated with diet-induced milk fat depression in dairy cows[J]. Metabolites, 2019, 9(7):154.

[35]
ZHANG M G, LI G D, WANG D, et al. Effects of α-amylase supplementation on production performance,blood metabolites,nutrient digestibility,and rumen fermentation parameters of Holstein dairy cows in late lactation[J]. Frontiers in Veterinary Science, 2025, 12:1629571.

[36]
PAUL S S, DEY A, BARO D, et al. Rumen microbiota in cattle and buffaloes:insights into host-specific bacterial diversity[J]. Biology, 2025, 14(9):1166.

文章导航

/