研究论文

凝结芽孢杆菌对大肠杆菌攻毒绵羊生长性能、肠道形态和屏障功能以及粪便微生物区系的影响

  • 张悦 ,
  • 高睿成 ,
  • 郑好 ,
  • 辛杭书 ,
  • 孙雨坤 , *
展开
  • 东北农业大学动物科学技术学院, 哈尔滨 150030
*孙雨坤,副教授,硕士生导师,E-mail:

张 悦(2000—),女,江苏南通人,硕士研究生,研究方向为动物生产。E-mail:

Office editor: 田艳明

收稿日期: 2025-12-29

  网络出版日期: 2026-08-13

基金资助

国家重点研发计划项目-农牧交错区家庭牧场关键技术集成示范(2024YFD1301100)

内蒙古“东北振兴”支持计划(2023YFDZ0004)

黑龙江省教育厅“优秀青年教师基础研究支持计划”(YQJH2023199)

Effects of Bacillus coagulans on Growth Performance, Intestinal Morphology and Barrier Function, and Fecal Microbiota of Sheep Challenged with Escherichia coli

  • ZHANG Yue ,
  • GAO Ruicheng ,
  • ZHENG Hao ,
  • XIN Hangshu ,
  • SUN Yukun , *
Expand
  • College of Animal Science and Technology, Northeast Agricultural University, Harbin 150030, China
*associate professor, E-mail:

Received date: 2025-12-29

  Online published: 2026-08-13

摘要

本试验旨在研究饲粮添加凝结芽孢杆菌(BC)对产肠毒素大肠杆菌(ETEC)攻毒绵羊生长性能、肠道形态和屏障功能以及粪便微生物区系的影响。选取15只体重为(26.41±2.07) kg的杜泊羊,随机分为3组,每组5个重复,每个重复1只羊。对照组(CON组)和ETEC组饲喂基础饲粮,BC组在基础饲粮的精料部分添加109 CFU/kg的BC。预试期14 d,正试期60 d。正试期第60天时,ETEC组和BC组绵羊灌服1 mL浓度为1.0×10⁸ CFU/mL的ETEC菌悬液,CON组绵羊灌服相同剂量的无菌生理盐水,24 h后屠宰取样。结果表明:1)与ETEC组相比,BC组绵羊末重显著提高(P<0.05)。2)CON组空肠和回肠绒毛结构完好,ETEC组绒毛结构出现明显断裂和萎缩性病变,BC组肠道损伤较轻。在空肠组织中,ETEC组和BC组绒毛高度显著低于CON组(P<0.05);ETEC组隐窝深度显著高于CON组和BC组(P<0.05);CON组绒隐比显著高于ETEC组和BC组(P<0.05),同时BC组绒隐比显著高于ETEC组(P<0.05)。在回肠组织中,CON组和BC组绒毛高度显著高于ETEC组(P<0.05);同时,CON组绒隐比显著高于ETEC组(P<0.05)。3)在空肠组织中,BC组闭锁小带蛋白-1(ZO-1)mRNA相对表达量显著高于CON组和ETEC组(P<0.05);在回肠组织中,与CON组相比,BC组干扰素-γ(IFN-γ)mRNA相对表达量显著提高(P<0.05),ETEC组IFN-γ mRNA相对表达量极显著提高(P<0.01),ETEC组和BC组肿瘤坏死因子-α(TNF-α)mRNA相对表达量极显著降低(P<0.01)。4)ETEC组与BC组间粪便微生物群落α多样性无显著差异(P>0.05)。线性判别分析效应大小(LEfSe)分析结果表明,厚壁菌门、乳杆菌科和乳杆菌属在BC组显著富集(P<0.05),而螺旋体门、密螺旋体属和异杆菌属等在ETEC组显著富集(P<0.05)。综上所述,饲粮添加BC可通过改善肠道形态、上调紧密连接蛋白相关基因表达、调节炎症因子平衡以及维持微生物群落结构稳定,从而缓解大肠杆菌攻毒对绵羊肠道健康的损伤,保障肠道屏障功能和免疫稳态。

本文引用格式

张悦 , 高睿成 , 郑好 , 辛杭书 , 孙雨坤 . 凝结芽孢杆菌对大肠杆菌攻毒绵羊生长性能、肠道形态和屏障功能以及粪便微生物区系的影响[J]. 动物营养学报, 2026 , 38(8) : 5980 -5991 . DOI: 10.12418/CJAN2026.479

Abstract

This experiment was conducted to investigate the effects of dietary supplementation with Bacillus coagulans (BC) on growth performance, intestinal morphology and barrier function, and fecal microbiota of sheep challenged with enterotoxigenic Escherichia coli (ETEC). Fifteen Dorper sheep with a body weight of (26.41±2.07) kg were selected and randomly divided into 3 groups, with 5 replicates in each group and 1 sheep in each replicate. Sheep in the control group (CON group) and ETEC group were fed a basal diet, while those in BC group fed the basal diet supplemented with 109 CFU/kg BC in the concentrate. The pre-trial period lasted for 14 days, and the formal trial period lasted for 60 days. On day 60 of the formal trial period, sheep in ETEC group and BC group were administered 1 mL ETEC bacterial suspension with a concentration of 1.0×10⁸ CFU/mL by gavage, while sheep in CON group were administered the same dose of sterile normal saline by gavage. Samples were collected at 24 h post-slaughter. The results showed as follows: 1) compared with ETEC group, the final body weight of sheep in BC group was significantly increased (P<0.05). 2) The villus structure in jejunum and ileum in CON group was intact, while obvious fractures and atrophic lesions occurred in villus structure in ETEC group, and the intestinal injury in BC group was relatively mild. In jejunal tissue, the villus height in ETEC group and BC group was significantly lower than that in CON group (P<0.05); the crypt depth in ETEC group was significantly higher than that in CON group and BC group (P<0.05); the villus height to crypt depth ratio in CON group was significantly higher than that in ETEC group and BC group (P<0.05), and the villus height to crypt depth ratio in BC group was significantly higher than that in ETEC group (P<0.05). In ileal tissue, the villus height in CON group and BC group was significantly higher than that in ETEC group (P<0.05); meanwhile, the villus height to crypt depth ratio in CON group was significantly higher than that in ETEC group (P<0.05). 3) In jejunal tissue, the zonula occludens-1 (ZO-1) mRNA relative expression level in BC group was significantly higher than that in CON group and ETEC group (P<0.05). In ileal tissue, compared with CON group, the interferon-γ (IFN-γ) mRNA relative expression level in BC group was significantly increased (P<0.05), the IFN-γ mRNA relative expression level in ETEC group was extremely significantly increased (P<0.01), and the tumor necrosis factor-α (TNF-α) mRNA relative expression level in ETEC group and BC group was extremely significantly decreased (P<0.01). 4) There was no significant difference in α diversity of fecal microbiota between ETEC group and BC group (P>0.05). The results of the linear discriminant analysis effect size (LEfSe) analysis indicated that the Firmicutes, Lactobacillaceae and Lactobacillus were significantly enriched in BC group (P<0.05), while the Spirochaetes, Treponema and Allobaculum were significantly enriched in ETEC group (P<0.05). In conclusion, dietary supplementation with BC can alleviate the damage to intestinal health of sheep caused by Escherichia coli challenge by improving intestinal morphology, upregulating the expression of tight junction protein-related genes, regulating the balance of inflammatory factors, and maintaining the stability of microbiota structure, thereby ensuring intestinal barrier function and immune homeostasis.

腹泻是现代养殖业中普遍面临的重要问题,尤其对幼龄动物危害显著,严重威胁动物健康和生产力[1]。致病性大肠杆菌是引发动物腹泻的常见病原体之一,绵羊感染后多表现为腹泻或败血症,临床症状包括不同程度的腹泻脱水、心率加快以及直肠温度升高,严重感染时甚至导致动物急性死亡[2]。在当前的动物生产中,抗生素常被用于腹泻的预防和治疗。然而,畜牧养殖中抗生素的滥用,会导致耐药菌株和抗生素抗性基因传播等问题[3]。因此,开发安全、高效的抗生素替代品已成为饲料研究的新方向。
芽孢杆菌是一类革兰氏阳性、能产生内生孢子的好氧或兼性厌氧杆菌,具有耐高温、耐酸碱等抗逆性,在不利环境中可形成休眠芽孢以维持活性,在饲料加工过程中稳定性较高。在反刍动物饲粮中添加芽孢杆菌可以改善肠道微生态平衡,提高饲料利用率,增强动物免疫力并减少腹泻等疾病发生[4]。其作用机理一方面是芽孢杆菌可产生多种具有抗菌活性的代谢产物,如细菌素、铁载体、抗菌肽或表面活性剂等[5];另一方面,芽孢杆菌在动物消化道定植后可分泌多种消化酶,如枯草芽孢杆菌通过分泌纤维素酶、蛋白酶、淀粉酶,促进纤维素、蛋白质等营养物质分解,从而提高反刍动物营养物质表观消化率[6]
凝结芽孢杆菌(Bacillus coagulans,BC)作为一种同型发酵乳酸菌,它的代谢产物主要是L-乳酸,此外还能分泌凝结素、抗菌肽及各类消化酶[7]等物质。BC对动物健康的有益作用已在仔猪和鸡上得到证实,如BC可提高断奶仔猪体增重,降低腹泻率[8];BC还可调节鸡肠道微生物群落的多样性和结构,同时降低致病菌如沙门氏菌和大肠杆菌的相对丰度[9]。然而,目前关于BC能否有效增强绵羊对致病性大肠杆菌抵抗力的研究较少。因此,本研究通过对饲喂添加BC饲粮的绵羊进行产肠毒素大肠杆菌(ETEC)攻毒处理,通过系统评估BC在缓解攻毒诱导的肠道炎症反应及菌群结构紊乱中的作用效果,以期为防治绵羊大肠杆菌感染提供理论依据。

1 材料与方法

1.1 试验材料

本试验所用BC为市购产品,呈粉状,活菌数≥1.0×10⁹ CFU/g。

1.2 试验设计

本动物试验经东北农业大学实验动物福利与伦理委员会批准(批准号:NEAUEC20240234)。
试验选取15只体重为(26.41±2.07) kg的杜泊羊,随机分为3组,每组5个重复,每个重复1只羊。对照组(CON组)和ETEC组饲喂基础饲粮,BC组在基础饲粮的精料部分添加109 CFU/kg的BC。预试期14 d,正试期60 d。正试期第60天时,ETEC组和BC组绵羊灌服1 mL浓度为1.0×10⁸ CFU/mL的ETEC菌悬液,CON组绵羊灌服相同剂量的无菌生理盐水,24 h后屠宰取样。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)

项目 Items 含量 Content
原料 Ingredients
玉米 Corn 43.23
脱壳豆粕 Decorticated soybean meal 18.00
米糠粕 Rice bran meal 10.31
玉米纤维 Corn fiber 10.00
高油干酒糟及其可溶物
High-oil distillers dried grains with solubles
8.00
甘蔗糖蜜 Cane molasses 2.50
粗石粉(40目)
Coarse limestone powder (40-mesh)
1.70
氨化玉米秸秆
Ammoniated corn stalk
1.40
小苏打 NaHCO3 1.30
大豆油 Soybean oil 1.00
菌体蛋白 Microbial protein 1.00
食盐 NaCl 1.00
预混料 Premix1) 0.50
甜味剂 Sweetening agent 0.03
香味剂 Flavoring agent 0.03
合计 Total 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 8.96
粗蛋白质 CP 21.01
粗脂肪 EE 3.84
粗纤维 CF 3.87
中性洗涤纤维 NDF 34.00
钙 Ca 0.86

1)每千克预混料含有 Each kilogram of the premix contained the following:VA 1 300 000 IU,VD3 350 000 IU,VE 9 000 IU,Ca (as calcium sulfate) 186 g,P (as phosphorus sulfate) 41.5 g,Mg (as magnesium sulfate) 59 g,K (as potassium sulfate) 56 g,Co (as cobalt sulfate) 150 mg,Cu (as copper sulfate) 2 250 mg,Fe (as iron sulfate) 5 400 mg,I (as iodine sulfate) 200 mg,Mn (as manganese sulfate) 10 550 mg,Se (as selenium sulfate) 95 mg,Zn (as zinc sulfate) 11 000 mg。

2)代谢能为计算值,其他为实测值。ME was a calculated value, while the others were measured values.

1.3 饲养管理

饲养试验在内蒙古突泉县某家庭牧场开展。所有绵羊均采用单栏饲养模式,饲养于室内圈舍,自由采食和饮水。试验期间,每日于08:00和16:00分2次投喂饲粮,投喂顺序为先粗饲料后精饲料。根据个体采食情况调整每日饲喂量,以料槽中剩余料量约为投喂量的10%为准。试验期间定期对圈舍进行消毒,且未使用任何抗生素。

1.4 样品采集和处理

试验结束后,对所有试验羊进行屠宰,屠宰后迅速取空肠和回肠中段组织约5 cm,用无菌生理盐水冲洗干净,随后迅速置于4%多聚甲醛溶液中固定,室温下固定时间不少于48 h,以备后续肠道组织切片观察;同时,收集肠道组织和粪便样品于冻存管中,转入-80 ℃冰箱中保存,用于后续分析。

1.5 测定指标及方法

1.5.1 饲粮营养水平

饲粮代谢能参照《中国饲料成分及营养价值表(2021年第32版)》中各原料对应数值进行计算;粗蛋白质含量参照GB/T 6432—2018中方法测定,粗脂肪含量参照GB/T 6433—2006中方法测定,粗纤维含量参照GB/T 6434—2022中方法测定,中性洗涤纤维含量参照GB/T 20806—2022中方法测定,钙含量参照GB/T 6436—2018中方法测定。

1.5.2 生长性能

分别于正试期开始和结束时,对试验羊进行空腹称重;试验期间,记录每日喂料量和剩余料量,并计算平均日采食量(ADFI)、平均日增重(ADG)和料重比(F/G)。

1.5.3 肠道形态

取出在4%多聚甲醛溶液中固定的肠道组织样品,依次经脱水、透明、浸蜡、石蜡包埋、切片及苏木精-伊红(HE)染色处理后,在显微镜下观察肠道形态结构,并在每张切片中随机选取3~5个具有代表性的视野,每个视野测量10根形态平直、走向一致的绒毛,分别测定其绒毛高度(villus height,VH)和隐窝深度(crypt depth,CD),并计算绒隐比(V/C)。

1.5.4 肠道炎症和屏障功能相关基因表达

取出在-80 ℃冰箱中保存的肠道组织样品,剪取50 mg组织于研磨管中,采用RNA提取试剂盒(9109,TaKaRa,日本),按照说明书提取总RNA;然后采用分光光度计(NanoDrop 2000,Thermo Scientific,美国)检测RNA浓度和纯度;再用反转录试剂盒(RR047A,TaKaRa,日本)将上述RNA样品反转录成cDNA。各检测基因引物序列由生工生物工程(上海)股份有限公司合成,引物序列见表2。采用SYBR® Premix Ex Taq试剂盒(RR420A,TaKaRa,日本)进行实时荧光定量PCR,反应体系为10 μL。以β-肌动蛋白(β-actin)为内参基因,采用2-△△Ct法计算目的基因mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
β-肌动蛋白 β-actin F:TCCTTCCTGGGCATGGAATC
R:CGTAAAGGTCCTTGCGGATG
XM_060405599.1
干扰素-γ IFN-γ F:AAGTTCTTGAACGGCAGCTCTGAG
R:TTGGCGACAGGTCATTCATCACC
NM_001009803.1
肿瘤坏死因子-α TNF-α F:ACACTCAGGTCATCTTCTC
R:GGTTGTCTTTCAGCTCCA
NM_001024860.1
白细胞介素-10 IL-10 F:AGTCTTCAATATGCTCCAAGAGAG
R:CCTGGGTCGGATTTCAGAGG
NM_001009327.1
闭锁小带蛋白-1 ZO-1 F:CTGATGGTGTCCTGCCCAAT
R:GGCTGTCTTCGAGAACACCA
XM_042235170.2
闭合蛋白 Occludin F:ACCAGCGTTGTAAGGTCAGG
R:TGTAGAGAGACCCAGAGGCC
XM_015101255.4

1.5.5 粪便微生物区系

粪便样品的预处理、上机检测、质谱检测条件以及原始数据处理由上海派森诺生物科技股份有限公司完成。原始下机数据经序列质量初筛、处理问题样本后,将经过质量初筛的序列按index和barcode划分文库及样本并去除barcode序列,按照QIIME2 DADA2和Vsearch流程进行序列去噪和扩增子序列变体(ASV)聚类,随后通过派森诺分析平台进一步进行微生物群落结构和差异物种的线性判别分析(LDA)效应大小(LEfSe)分析。

1.6 数据统计分析

采用Excel 2019对试验数据进行初步整理,然后采用SPSS 29.0软件进行单因素方差分析(one-way ANOVA),并结合方差齐性检验及LSD法进行多重比较,结果数据以平均值和均值标准误(SEM)表示;采用GraphPad Prism 10.1.2软件进行绘图,P<0.01表示差异极显著,P<0.05表示差异显著,0.05≤P<0.10表示差异有显著趋势。

2 结果与分析

2.1 饲粮添加BC对大肠杆菌攻毒绵羊生长性能的影响

表3可知,与CON组相比,BC组绵羊末重有所提高,但差异不显著(P>0.05);与ETEC组相比,BC组末重显著提高(P<0.05)。各组间ADG、ADFI和F/G均无显著差异(P>0.05)。
表3 饲粮添加BC对大肠杆菌攻毒绵羊生长性能的影响

Table 3 Effects of dietary BC supplementation on growth performance of sheep challenged with Escherichia coli

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON ETEC BC
初重 IBW/kg 26.64 25.24 27.36 0.535 0.276
末重 FBW/kg 39.48ab 38.32b 42.36a 0.703 0.039
平均日增重 ADG/(kg/d) 0.21 0.22 0.25 0.011 0.352
平均日采食量 ADFI/(kg/d) 1.50 1.49 1.50 0.004 0.174
料重比 F/G 7.08 7.19 6.15 0.331 0.401

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。表4同。

In the same row, values with no letter or the same letter superscripts indicated no significant difference (P>0.05), while with different letter superscripts indicated significant difference (P<0.05). The same as Table 4.

2.2 饲粮添加BC对大肠杆菌攻毒绵羊肠道形态的影响

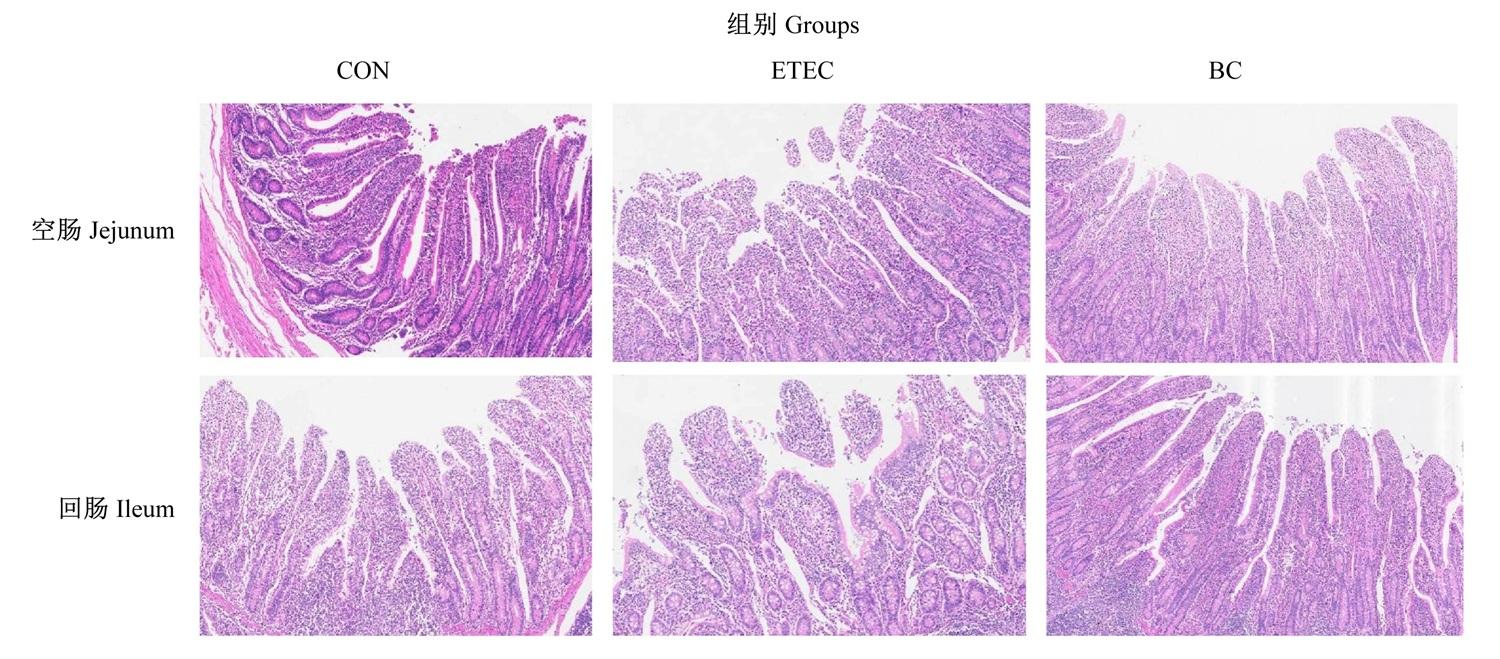
图1所示,CON组绵羊空肠和回肠绒毛结构完好,排列有序;ETEC组肠道绒毛出现明显断裂和萎缩性病变;与ETEC组相比,BC组肠道组织损伤明显减轻,主要表现为绒毛高度和结构得到更好维持,上皮细胞脱落减少。
图1 绵羊肠道组织石蜡包埋切片HE染色图

Fig.1 HE staining images of paraffin embedded sections of intestinal tissues of sheep (400×)

表4可知,在绵羊空肠组织中,ETEC组和BC组绒毛高度显著低于CON组(P<0.05),BC组绒毛高度有高于ETEC组的趋势(0.05≤P<0.10);ETEC组隐窝深度显著高于CON组和BC组(P<0.05);CON组绒隐比显著高于ETEC组和BC组(P<0.05),同时BC组绒隐比显著高于ETEC组(P<0.05)。在回肠组织中,CON组和BC组绒毛高度显著高于ETEC组(P<0.05);同时,CON组绒隐比显著高于ETEC组(P<0.05),BC组绒隐比有高于ETEC组的趋势(0.05≤P<0.10)。
表4 饲粮添加BC对大肠杆菌攻毒绵羊肠道形态的影响

Table 4 Effects of dietary BC supplementation on intestinal morphology of sheep challenged with Escherichia coli

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
CON ETEC BC
空肠 Jejunum
绒毛高度 VH/μm 479.55a 418.52bc 431.51b 9.432 0.008
隐窝深度 CD/μm 256.85bc 290.19a 268.20b 4.703 0.003
绒隐比 V/C 1.87a 1.44c 1.61b 0.055 <0.001
回肠 Ileum
绒毛高度 VH/μm 460.05a 434.39c 456.57ab 4.111 0.009
隐窝深度 CD/μm 254.67 264.45 263.66 2.910 0.337
绒隐比 V/C 1.81a 1.64b 1.73ab 0.029 0.047

2.3 饲粮添加BC对大肠杆菌攻毒绵羊肠道屏障功能相关基因表达的影响

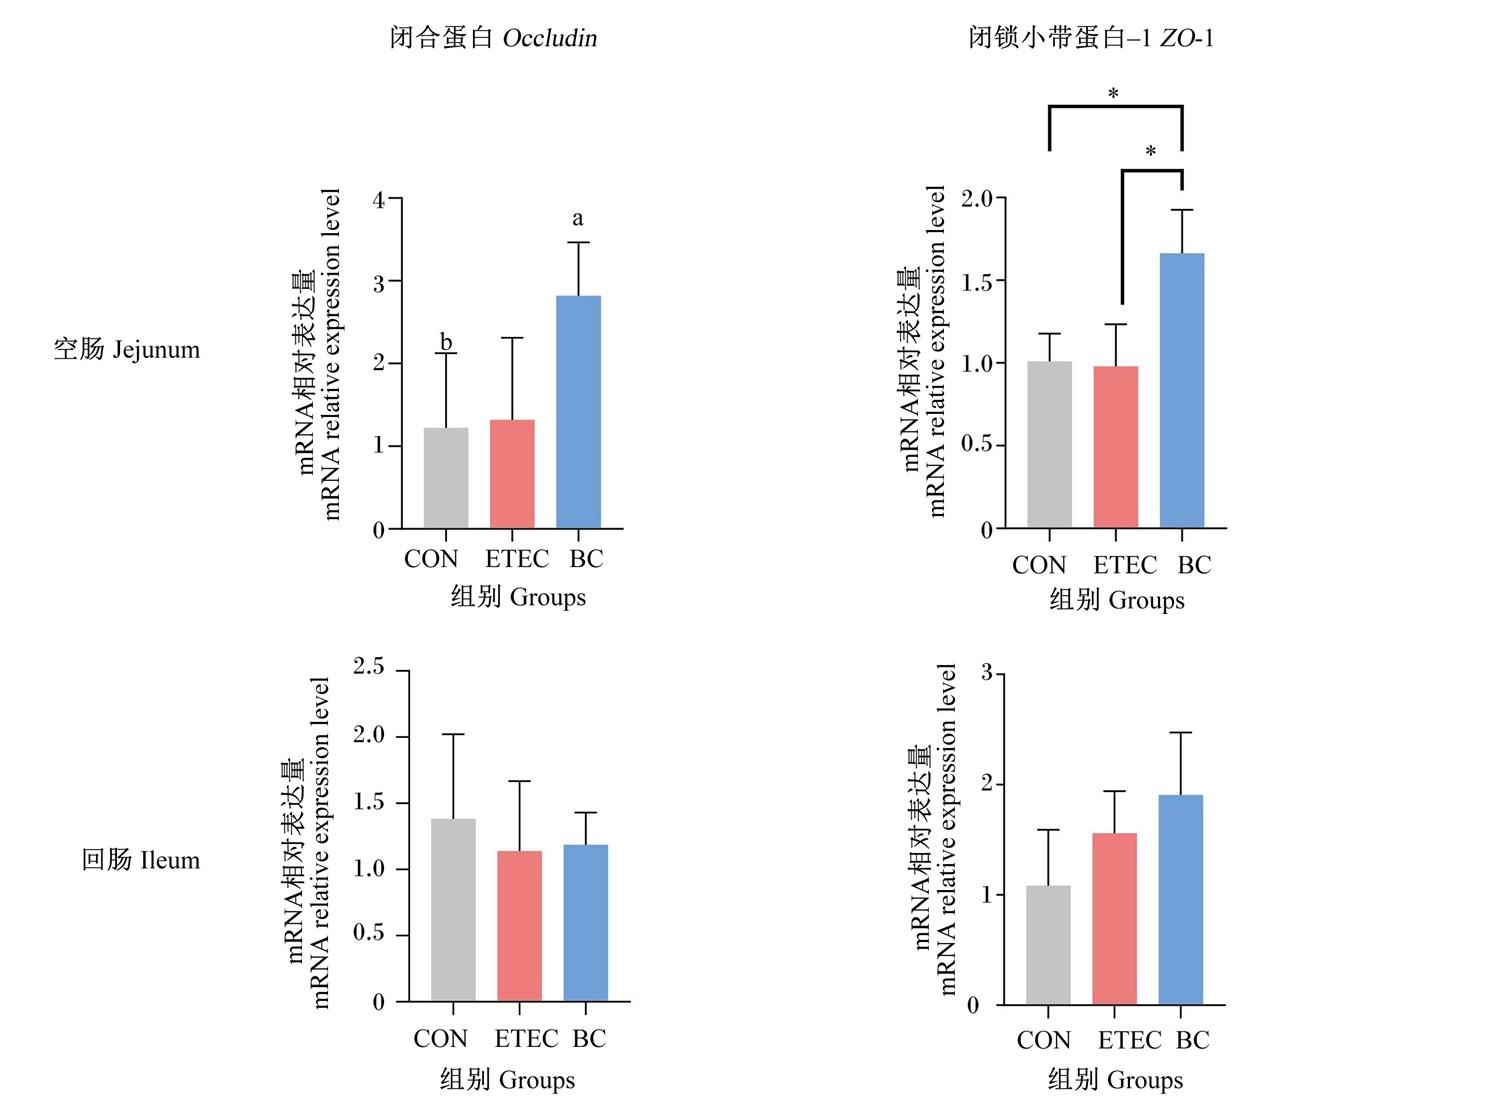
图2所示,在绵羊空肠组织中,与CON组相比,BC组闭合蛋白(Occludin)mRNA相对表达量有提高趋势(0.05≤P<0.10),闭锁小带蛋白-1(ZO-1)mRNA相对表达量显著提高(P<0.05);与ETEC组相比,BC组ZO-1 mRNA相对表达量显著提高(P<0.05)。在回肠组织中,各组间OccludinZO-1 mRNA相对表达量无显著差异(P>0.05)。
图2 饲粮添加BC对大肠杆菌攻毒绵羊肠道屏障功能相关基因表达的影响

柱形图标注*表示差异显著(P<0.05),**表示差异极显著(P<0.01),不同小写字母表示差异有显著趋势(0.05≤P<0.10)。图3同。

Fig.2 Effects of dietary BC supplementation on expression of genes related to intestinal barrier function of sheep challenged with Escherichia coli

Value columns marked with * indicated significant difference (P<0.05), with ** indicated extremely significant difference (P<0.01), and with different small letters indicated trend of significant difference (0.05≤P<0.10). The same as Fig.3.

2.4 饲粮添加BC对大肠杆菌攻毒绵羊肠道炎症相关基因表达的影响

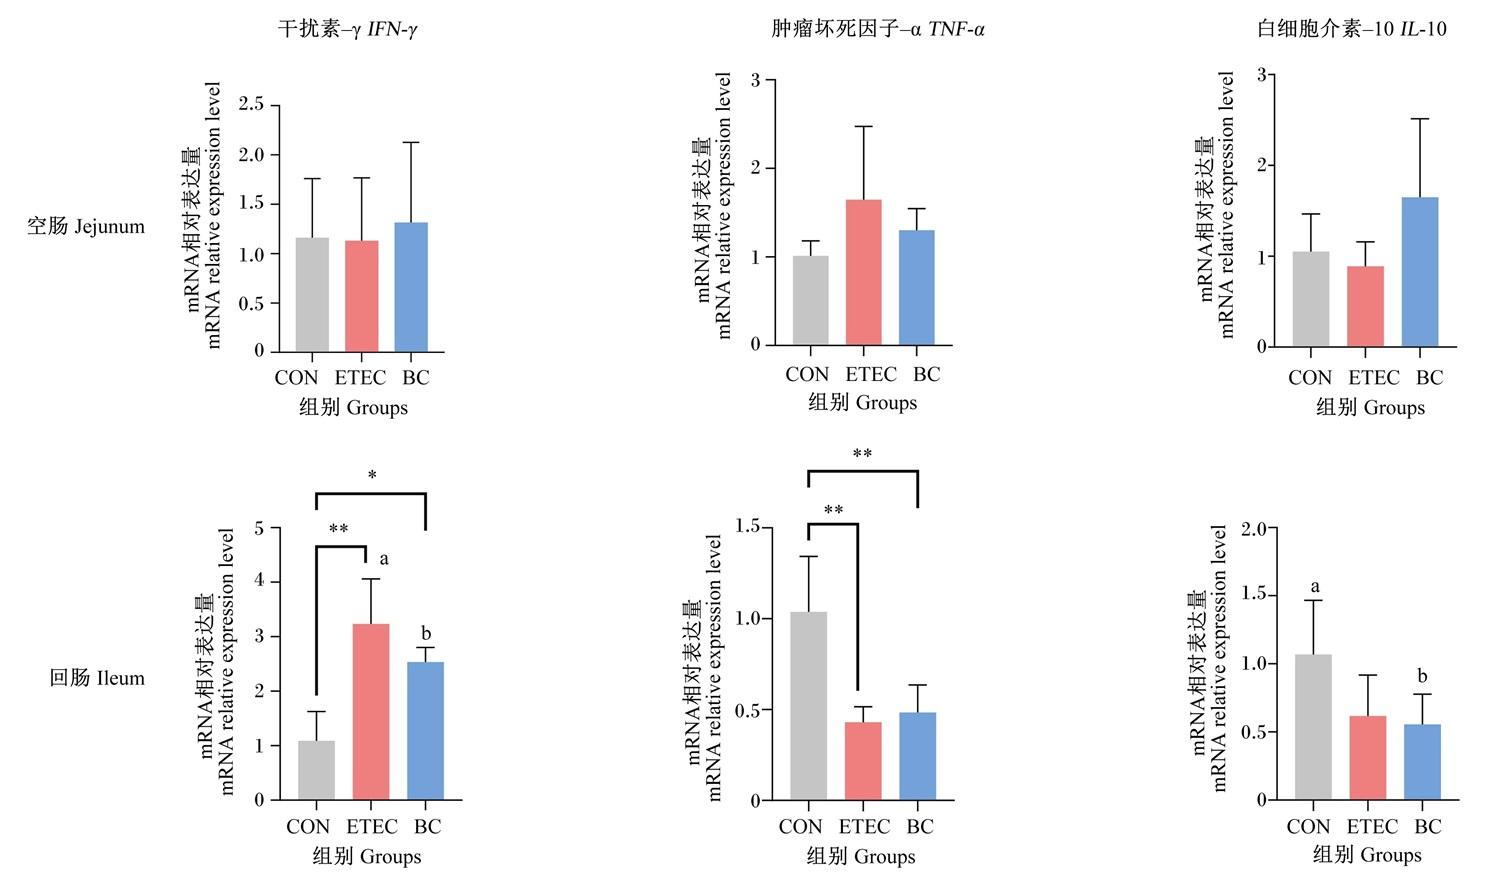
图3所示,在绵羊空肠组织中,各组间干扰素-γ(IFN-γ)、肿瘤坏死因子-α(TNF-α)和白细胞介素-10(IL-10)mRNA相对表达量均无显著差异(P>0.05)。在回肠组织中,与CON组相比,BC组IFN-γ mRNA相对表达量显著提高(P<0.05),ETEC组IFN-γ mRNA相对表达量极显著提高(P<0.01),ETEC组和BC组TNF-α mRNA相对表达量极显著降低(P<0.01),BC组IL-10 mRNA相对表达量有降低趋势(0.05≤P<0.10);与ETEC组相比,BC组IFN-γ mRNA相对表达量有降低趋势(0.05≤P<0.10)。
图3 饲粮添加BC对大肠杆菌攻毒绵羊肠道炎症相关基因表达的影响

Fig.3 Effects of dietary BC supplementation on expression of genes related to intestinal inflammation of sheep challenged with Escherichia coli

2.5 饲粮添加BC对大肠杆菌攻毒绵羊粪便微生物区系的影响

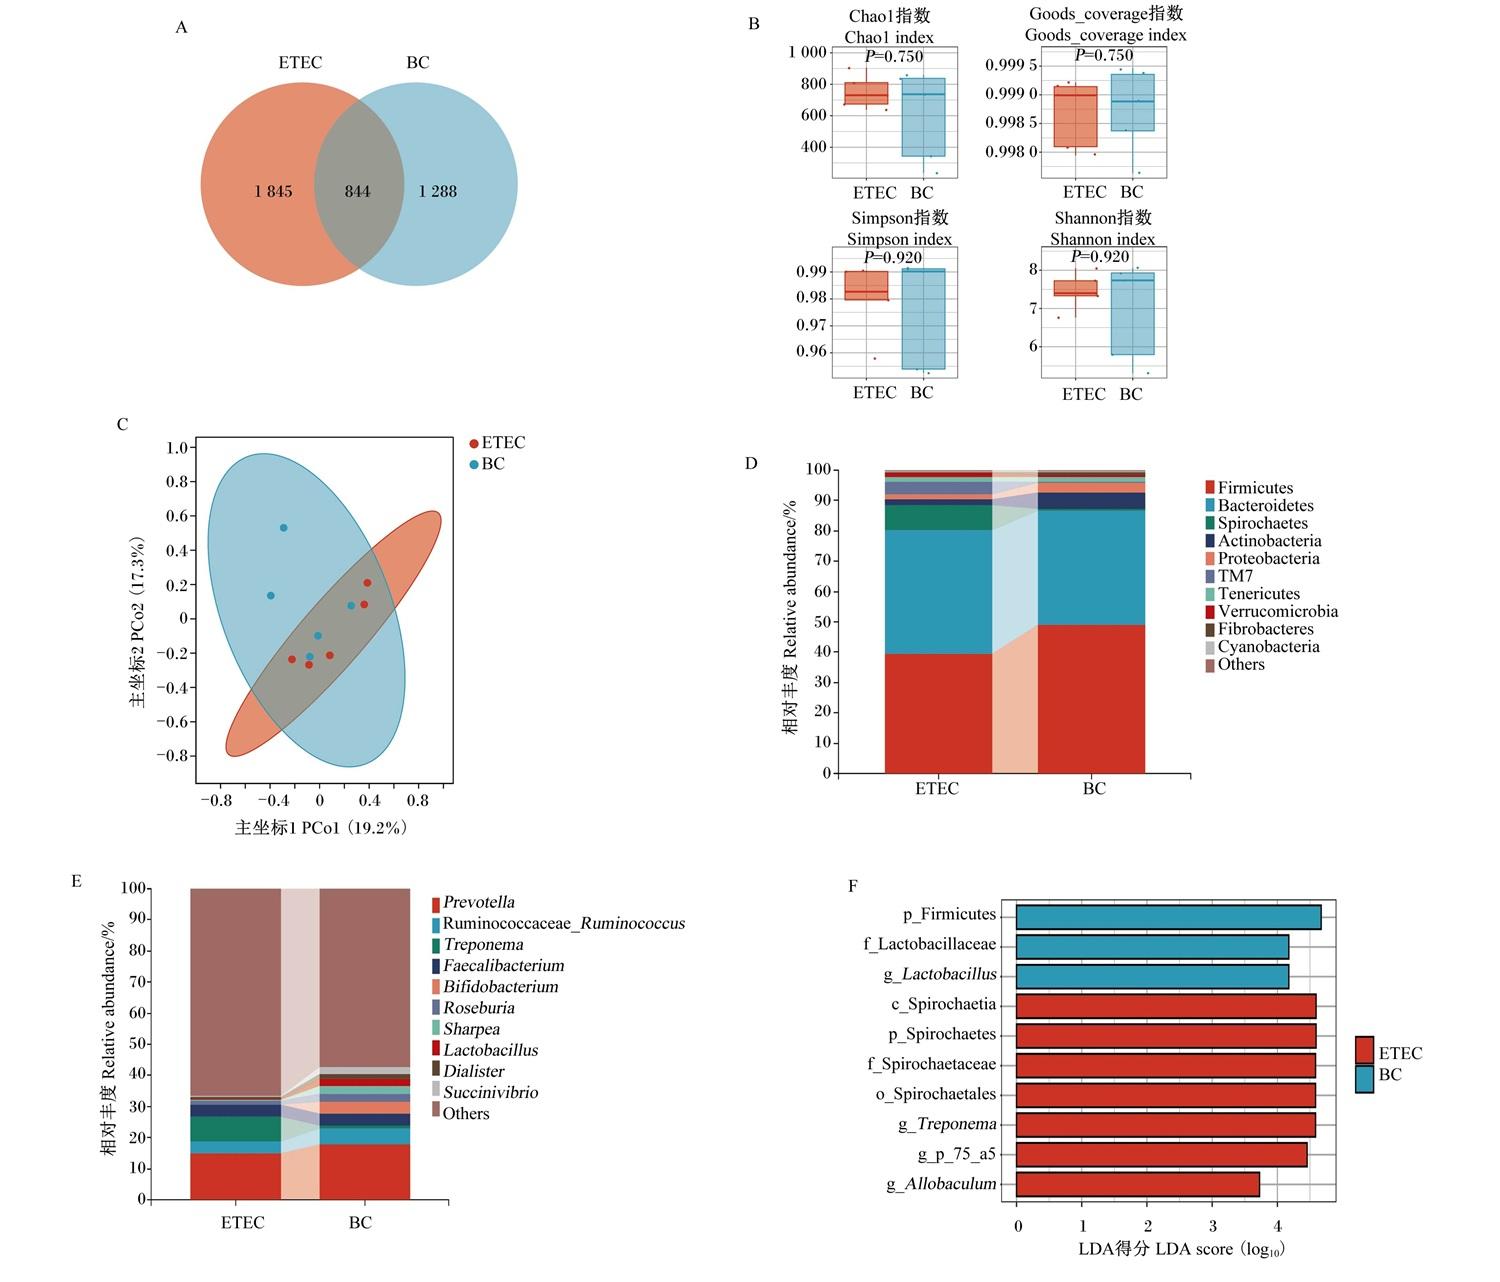
本试验选择ETEC组和BC组进行绵羊粪便微生物区系的比较。如图4-A所示,ETEC组特有ASV数为1 845个,BC组特有ASV数为1 288个,2组共有ASV数为844个。如图4-B所示,α多样性分析结果表明,2组间Chao1指数、Goods_coverage指数、Simpson指数和Shannon指数均无显著差异(P>0.05)。如图4-C所示,主坐标分析(PCoA)结果表明,主坐标1(PCo1)和主坐标2(PCo2)的变异贡献量分别为19.2%和17.3%,2组间样本有交叉也有分离。如图4-D所示,在门水平上,厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidetes)为2个主要的菌门;与ETEC组相比,BC组厚壁菌门相对丰度有所提高,螺旋体门(Spirochaetes)相对丰度有所降低。如图4-E所示,在属水平上,普雷沃氏菌属(Prevotella)、瘤胃球菌科瘤胃球菌属(Ruminococcaceae_Ruminococcus)、密螺旋体属(Treponema)和粪杆菌属(Faecalibacterium)为4个主要的菌属;与ETEC组相比,BC组普雷沃氏菌属、双歧杆菌属(Bifidobacterium)和乳杆菌属(Lactobacillus)等相对丰度有所提高,密螺旋体属相对丰度有所降低。如图4-F所示,以LDA得分>3、P<0.05为判断标准,差异物种LEfSe分析结果表明,厚壁菌门、乳杆菌科(Lactobacillaceae)和乳杆菌属在BC组显著富集,而螺旋体门、密螺旋体属和异杆菌属(Allobaculum)等在ETEC组显著富集。
图4 饲粮添加BC对大肠杆菌攻毒绵羊粪便微生物区系的影响

A:ASV韦恩图 Venn diagram of ASV;B:α多样性分析 α diversity analysis;C:主坐标分析 PCoA;D:在门水平上组成 composition at phylum level;E:在属水平上组成 composition at genus level;F:差异物种LEfSe分析 LEfSe analysis of differential species。

ETEC:ETEC组 ETEC group;BC:BC组 BC group;Firmicutes:厚壁菌门;Bacteroidetes:拟杆菌门;Spirochaetes:螺旋体门;Actinobacteria:放线菌门;Proteobacteria:变形菌门;Tenericutes:软壁菌门;Verrucomicrobia:疣微菌门;Fibrobacteres:纤维杆菌门;Cyanobacteria:蓝细菌门;Others:其他;Prevotella:普雷沃氏菌属;Ruminococcaceae_Ruminococcus:瘤胃球菌科瘤胃球菌属;Treponema:密螺旋体属;Faecalibacterium:粪杆菌属;Bifidobacterium:双歧杆菌属;Roseburia:罗氏菌属;Sharpea:夏普氏菌属;Lactobacillus:乳杆菌属;Dialister:戴阿利斯特杆菌属;Succinivibrio:琥珀酸弧菌属;Lactobacillaceae:乳杆菌科;Spirochaetia:螺旋体纲;Spirochaetaceae:螺旋体科;Spirochaetales:螺旋体目;Allobaculum:异杆菌属。

Fig.4 Effects of dietary BC supplementation on fecal microbiota of sheep challenged with Escherichia coli

3 讨论

肠道屏障功能的完整性依赖于物理屏障、化学屏障、免疫防御与微生物屏障之间的协同作用,共同防止有害物质侵入体内并维持机体稳态。本研究中,饲粮添加BC可以通过改善肠道形态、上调紧密连接蛋白表达等,显著缓解大肠杆菌引起的肠道损伤,提高绵羊的抗腹泻能力。其他研究也表明,BC能够通过调节肠道菌群组成和丰度来维持肠道微生态平衡,同时激活免疫细胞、促进免疫相关细胞因子的分泌,进而有效提升机体的免疫功能[9]
位于肠道隐窝的肠道干细胞通过持续增殖与分化,形成吸收细胞、杯状细胞和潘氏细胞等多种类型上皮细胞,这些上皮细胞通过细胞间紧密连接形成连续的机械屏障,有效阻止肠腔内外源性物质的异常渗透,进而维持肠道黏膜完整性及内环境稳态[10]。肠道紧密连接遭到破坏不仅影响正常的消化吸收功能,也会损害肠道屏障的整体功能。研究表明,ETEC可通过其定植因子黏附于小肠上皮细胞,并分泌热稳定肠毒素(heat-stable enterotoxin,ST)或热不稳定肠毒素(heat-labile enterotoxin,LT),破坏肠上皮紧密连接完整性,同时诱导炎症细胞因子分泌,最终引发分泌性腹泻[11]。本研究中,绵羊肠道组织切片的HE染色形态学观察结果显示,ETEC感染破坏了绵羊空肠和回肠黏膜结构,具体表现为绒毛萎缩、隐窝异常增生,并伴有微绒毛排列紊乱及上皮细胞脱落。该结果与茹敏等[12]研究中关于大肠杆菌诱导肠黏膜损伤的病理报道相一致。此外,已有研究指出,益生菌能够通过激活Toll样受体2(TLR2)等受体调节紧密连接蛋白表达,从而改善肠道屏障功能[13]。本研究中也观察到,BC组肠道黏膜损伤程度较轻,进一步证实了BC对肠道黏膜具有一定保护作用。
肠道形态结构的完整性是维持机体营养吸收和代谢稳态的重要生理基础。其中,绒毛高度、隐窝深度及二者的比值(绒隐比)是评价肠道消化吸收功能的关键组织形态学指标[14]。绒毛高度直接反映肠道用于营养物质吸收的表面积,隐窝深度则指示上皮细胞的增殖活性。健康的肠道通常表现为绒毛高、隐窝浅,因而具有较高的绒隐比[15]。本试验结果显示,与ETEC组相比,BC组绵羊空肠和回肠绒毛高度分别提高了3.10%和5.11%,表明BC干预有效增加了肠道吸收面积,从而可能提升营养物质的吸收效率。同时,BC组空肠隐窝深度较ETEC组显著降低了7.58%,此形态学指标改善提示BC可能促进了肠上皮细胞的健康增殖与更新。这一发现与王雪艳等[16]的研究结果相符,即在饲粮中添加BC可显著提高肉鸡空肠绒隐比。综上所述,本研究结果表明,BC对肠道形态具有保护作用,能够有效缓解ETEC感染引起的肠黏膜结构损伤,进一步验证了益生菌可通过促进肠上皮的再生与修复来维持肠道屏障完整性[17]
紧密连接是维持肠道物理屏障完整性的关键结构,其稳定性依赖于跨膜蛋白与细胞内斑块蛋白的协同作用[18]。紧密连接相关蛋白的表达水平及其空间定位变化可直接反映肠道屏障功能状态,其中Occludin和ZO-1在维持上皮屏障完整性方面尤为关键。本试验结果显示,与CON组相比,BC组绵羊空肠Occludin mRNA相对表达量呈提高趋势,空肠ZO-1 mRNA相对表达量显著提高;同时,与ETEC组相比,BC组空肠ZO-1 mRNA相对表达量显著提高。上述结果提示,BC可能通过上调紧密连接关键蛋白的表达,增强肠上皮紧密连接结构的稳定性,从而改善肠道屏障功能。Occludin作为紧密连接的重要跨膜蛋白,参与调控上皮及内皮细胞屏障通透性,并通过维持紧密连接复合体稳定性和调节皮质肌动蛋白组装,在肠道稳态中发挥重要作用。已有研究报道,动物在腹泻等病理状态下,肠道Occludin的mRNA相对表达量显著下调,并伴随着肠道屏障功能受损[19]。本研究中,BC组空肠Occludin mRNA相对表达量呈提高趋势,提示饲粮添加BC可能对病理状态下的肠道紧密连接损伤具有一定的修复或保护作用。ZO-1作为紧密连接的核心胞质衔接蛋白,连接跨膜紧密连接蛋白与细胞骨架,在维持紧密连接结构完整性和稳定性中发挥作用。研究表明,ZO-1缺失不仅会破坏紧密连接完整性,还可抑制肠上皮细胞增殖并诱导细胞凋亡[20]。本研究中,BC组空肠ZO-1 mRNA相对表达量显著高于CON组和ETEC组,进一步表明BC有助于缓解ETEC诱导的肠道屏障损伤,增强紧密连接结构的稳固性。该结果与先前研究结论一致,例如乳果糖-BC合生素可通过稳定紧密连接结构缓解脂多糖(LPS)诱导的肠道损伤[21],同时也印证了BC MZY531菌株经由ZO-1通路修复肠黏膜损伤的机制[22],进一步揭示了BC通过调控紧密连接蛋白表达以增强肠道屏障功能的潜在途径。
TNF-α作为一种关键的促炎细胞因子,在激活免疫效应细胞及介导炎症级联反应中具有核心作用,其过度表达可引发组织病理损伤并加剧系统性炎症反应[23]。然而,在本研究中,ETEC组绵羊回肠TNF-α mRNA相对表达量较CON组显著降低,这可能是大肠杆菌攻毒后,机体通过下调TNF-α表达,避免其过度释放引发的肠黏膜细胞凋亡。IFN-γ是一种促炎性介质,可以诱导多种促炎因子产生,激活核因子-κB(NF-κB)信号通路,参与炎症反应[24]。研究显示,肠上皮细胞在大肠杆菌刺激下可迅速激活促炎信号通路,显著提高促炎因子水平[25]。本研究中,ETEC组绵羊回肠IFN-γ mRNA相对表达量较CON组显著升高,提示肠道炎症反应的激活,而BC组回肠IFN-γ mRNA相对表达量较ETEC组有降低趋势,表明BC可能增强了肠道的免疫调节能力。IL-10作为维持免疫稳态的核心调控因子,通过抑制促炎介质释放及调节免疫细胞活化阈值,在限制过度炎症反应中发挥关键作用[26]。本研究中,BC组可能由于BC已有效下调了TNF-α的表达、缓解了炎症压力,机体无需合成大量IL-10来抑制炎症,所以IL-10 mRNA相对表达量呈现下降趋势。研究表明,BC可通过分泌抗菌肽及细菌素等代谢产物抑制病原菌定植[27],进而调节微生物-宿主互作重建肠道免疫微环境稳态。本研究进一步证实了BC对促炎/抗炎因子平衡的调节作用。
幼龄动物在发育阶段,肠道微生物群落结构不稳定,易受周围环境影响,不稳定的肠道微生物群落是动物腹泻的主要原因之一。益生菌通过调节肠道菌群结构和血液代谢物,对宿主动物的营养代谢及免疫功能具有显著的调控作用。本研究中,ETEC组和BC组绵羊粪便微生物群落结构虽存在一定程度的波动,但基本保持稳定,未发生显著变化。该现象可能与攻毒方式及微生物群落响应的时间特性密切相关。已有研究表明,肠道微生物群落结构的稳定性较高,其显著变化通常需要较长时间的持续干预[28],而短期或一次性的病原刺激更倾向于首先引发肠道免疫系统层面的功能性应答[29]。考虑到本研究中ETEC攻毒属于急性刺激,作用时间有限,可能难以在短时间内引起粪便微生物群落组成的显著改变。与此同时,长期补充BC可能在本研究中也发挥了维持肠道微生态稳态的作用。作为一种具有较强耐受性和生物活性的益生菌,BC能够通过调节肠道环境、抑制病原菌黏附,提高肠道微生态的稳定性和抗干扰能力[30],从而减弱急性病原刺激对菌群结构的冲击。因此,本研究中绵羊粪便微生物群落结构的相对稳定,可能反映了BC在维持肠道微生态稳态方面的潜在益处。

4 结论

综上所述,饲粮添加BC可通过改善肠道形态、上调紧密连接蛋白相关基因表达、调节炎症因子平衡以及维持微生物群落结构稳定,从而缓解大肠杆菌攻毒对绵羊肠道健康的损伤,保障肠道屏障功能和免疫稳态,具备预防大肠杆菌引起的绵羊肠道功能紊乱的潜力。
[1]
ZHANG Y X, MA Y G, QI Y C. Potential relationship between gut microbiota and animal diarrhea:a systematic review[J]. Frontiers in Microbiology, 2025, 16:1637331.

[2]
EL-GBILY S, ELDOKMAK M M, DIABB R, et al. Severe lamb diarrhea outbreak:clinical features,identification of the causative agent,and a prophylactic approach[J]. Comparative Immunology,Microbiology and Infectious Diseases, 2025, 118:102318.

[3]
FRIERI M, KUMAR K, BOUTIN A. Antibiotic resistance[J]. Journal of Infection and Public Health, 2017, 10(4):369-378.

[4]
甘书灏, 唐胤晟, 张朝忠, 等. 不同芽孢杆菌对仔猪生长性能、全肠道养分消化率、血清生化指标及免疫球蛋白的影响[J]. 中国畜牧杂志, 2025, 61(6):351-355.

GAN S H, TANG Y S, ZHANG C Z, et al. Effects of different Bacillus on growth performance,total gastrointestinal nutrient digestibility,serum biochemical indices and immunoglobulins in piglets[J]. Chinese Journal of Animal Science, 2025, 61(6):351-355. (in Chinese)

[5]
MANETSBERGER J, GÓMEZ N C, BENOMAR N, et al. Antimicrobial activity of environmental Bacillus spp. and Peribacillus spp. isolates linked to surfactin,fengycin,bacillibactin and lantibiotics[J]. International Journal of Biological Macromolecules, 2025, 361(Pt 1):144644.

[6]
陈安淼, 吴倩莲, 彭唯实, 等. 枯草芽孢杆菌添加水平对雷州山羊养分表观消化率和粪便微生物的影响[J]. 饲料研究, 2025, 48(18):6-11.

CHEN A M, WU Q L, PENG W S, et al. Effect of Bacillus subtilis addition levels on nutrient apparent digestibility and fecal microbiota of Leizhou goats[J]. Feed Research, 2025, 48(18):6-11. (in Chinese)

[7]
CAO J, YU Z M, LIU W Y, et al. Probiotic characteristics of Bacillus coagulans and associated implications for human health and diseases[J]. Journal of Functional Foods, 2020, 64:103643.

[8]
夏英姿, 于振洋, 沈伦峰. 不同剂量饲用凝结芽孢杆菌对仔猪生长性能、免疫力及肠道菌群的影响[J]. 饲料研究, 2023, 46(11):31-34.

XIA Y Z, YU Z Y, SHEN L F. Effect of different doses of Bacillus coagulans on growth performance,immunity and intestinal microbiota of piglets[J]. Feed Research, 2023, 46(11):31-34. (in Chinese)

[9]
ZHANG B, ZHANG H R, YU Y, et al. Effects of Bacillus coagulans on growth performance,antioxidant capacity,immunity function,and gut health in broilers[J]. Poultry Science, 2021, 100(6):101168.

[10]
何悦, 程珂新, 李艳秋, 等. 肠道屏障在肠易激综合征发病机制中的研究进展[J]. 实用医学杂志, 2025, 41(16):2597-2603.

HE Y, CHENG K X, LI Y Q, et al. Research progress on intestinal barrier in irritable bowel syndrome pathogenesis[J]. The Journal of Practical Medicine, 2025, 41(16):2597-2603. (in Chinese)

[11]
PAKBIN B, BRÜCK W M, ROSSEN J W A. Virulence factors of enteric pathogenic Escherichia coli:a review[J]. International Journal of Molecular Sciences, 2021, 22(18):9922.

[12]
茹敏, 蒋小丰, 罗国升, 等. 饲粮添加枯草芽孢杆菌对大肠杆菌攻毒仔猪生长性能、血清免疫及抗氧化功能、肠道形态和微生物的影响[J]. 畜牧兽医学报, 2025, 56(9):4461-4471.

RU M, JIANG X F, LUO G S, et al. Effects of dietary Bacillus subtilis supplementation on growth performance,serum immunity and antioxidant function,intestinal morphology and microorganisms of piglets challenged with Escherichia coli[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(9):4461-4471. (in Chinese)

[13]
ROSE E C, ODLE J, BLIKSLAGER A T, et al.Probiotics, prebiotics and epithelial tight junctions:a promising approach to modulate intestinal barrier function[J]. International Journal of Molecular Sciences, 2021, 22(13):6729.

[14]
WANG Q Y, WANG Y C, WANG X, et al. Effects of dietary energy levels on rumen fermentation,microbiota,and gastrointestinal morphology in growing ewes[J]. Food Science & Nutrition, 2020, 8(12):6621-6632.

[15]
LIU C R, RADEBE S M, ZHANG H, et al. Effect of Bacillus coagulans on maintaining the integrity intestinal mucosal barrier in broilers[J]. Veterinary Microbiology, 2022, 266:109357.

[16]
王雪艳, 杨睿, 苗华彪, 等. 凝结芽孢杆菌和枯草芽孢杆菌的抑菌性能及其对肉鸡生长性能和肠道健康的影响[J]. 动物营养学报, 2025, 37(7):4422-4431.

WANG X Y, YANG R, MIAO H B, et al. Antibacterial properties of Bacillus coagulans and Bacillus subtilis and their effects on growth performance and intestinal health of broiler chickens[J]. Chinese Journal of Animal Nutrition, 2025, 37(7):4422-4431. (in Chinese)

[17]
GOU H Z, ZHANG Y L, REN L F, et al. How do intestinal probiotics restore the intestinal barrier?[J]. Frontiers in Microbiology, 2022, 13:929346.

[18]
SUZUKI T. Regulation of the intestinal barrier by nutrients:the role of tight junctions[J]. Animal Science Journal, 2020, 91(1):e13357.

[19]
毕师诚, 周翰林, 李子凯, 等. 赶黄草提取物缓解断奶仔猪腹泻的作用及机制[J]. 中国兽医学报, 2025, 45(9):1999-2007.

BI S C, ZHOU H L, LI Z K, et al. Effect and mechanism of Penthorum chinense Pursh extract on alleviating diarrhea in weaned piglets[J]. Chinese Journal of Veterinary Science, 2025, 45(9):1999-2007. (in Chinese)

[20]
YU S, HE J, XIE K P. Zonula occludens proteins signaling in inflammation and tumorigenesis[J]. International Journal of Biological Sciences, 2023, 19(12):3804-3815.

[21]
赵祖艳. 乳果糖-凝结芽孢杆菌合生素对断奶仔猪生长、肠道屏障及免疫功能的影响[D]. 硕士学位论文. 南京: 南京农业大学, 2021.

ZHAO Z Y. Effects of the synbiotic containing lactulose and Bacillus coagulans on growth,intestinal barrier and immune function of weaned piglets[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2021. (in Chinese)

[22]
ZHAO Z W, SUN M Q, CUI X M, et al. Bacillus coagulans MZY531 alleviates intestinal mucosal injury in immunosuppressive mice via modulating intestinal barrier,inflammatory response,and gut microbiota[J]. Scientific Reports, 2023, 13(1):11181.

[23]
WANG T T, HE C Q. Pro-inflammatory cytokines:the link between obesity and osteoarthritis[J]. Cytokine & Growth Factor Reviews, 2018, 44:38-50.

[24]
MÜHL H, PFEILSCHIFTER J. Anti-inflammatory properties of pro-inflammatory interferon-γ[J]. International Immunopharmacology, 2003, 3(9):1247-1255.

[25]
汪芹. 壮仔方对腹泻羔羊生长性能、肠道组织结构及细胞因子mRNA表达水平的影响[D]. 硕士学位论文. 重庆: 西南大学, 2023.

WANG Q. Effects of Zhuangzai formula on growth performance,intestinal structure and expression levels of cytokine mRNA in lambs with diarrhea[D]. Master’s Thesis. Chongqing: Southwest University, 2023. (in Chinese)

[26]
SANJABI S, ZENEWICZ L A, KAMANAKA M, et al. Anti-inflammatory and pro-inflammatory roles of TGF-beta,IL-10,and IL-22 in immunity and autoimmunity[J]. Current Opinion in Pharmacology, 2009, 9(4):447-453.

[27]
ZHANG J, GU S B, ZHANG T R, et al. Characterization and antibacterial modes of action of bacteriocins from Bacillus coagulans CGMCC 9951 against Listeria monocytogenes[J]. LWT-Food Science and Technology, 2022, 160:113272.

[28]
SOMMER F, ANDERSON J M, BHARTI R, et al. The resilience of the intestinal microbiota influences health and disease[J]. Nature Reviews Microbiology, 2017, 15(10):630-638.

[29]
PICKARD J M, ZENG M Y, CARUSO R, et al. Gut microbiota:role in pathogen colonization,immune responses,and inflammatory disease[J]. Immunological Reviews, 2017, 279(1):70-89.

[30]
BINDELS L B, DELZENNE N M, CANI P D, et al. Towards a more comprehensive concept for prebiotics[J]. Nature Reviews Gastroenterology & Hepatology, 2015, 12(5):303-310.

文章导航

/