研究论文

开口期摄食不同饵料鱼对鳜仔鱼生长、存活、消化生理及抗氧化能力的影响

  • 彭迪 , 1, 2 ,
  • 董立学 1 ,
  • 程珂 1 ,
  • 文华 1 ,
  • 朱峰跃 , 1, * ,
  • 蒋明 , 1, *
展开
  • 1 中国水产科学研究院长江水产研究所, 武汉 430223
  • 2 中国水产科学研究院淡水渔业研究中心, 无锡 214062
*朱峰跃,助理研究员,E-mail: ;
蒋 明,研究员,硕士生导师,E-mail:

彭 迪(1994—),男,湖北武汉人,助理研究员,博士,从事水产动物营养与饲料研究。E-mail:

Office editor: 靳 爽

收稿日期: 2026-01-04

  网络出版日期: 2026-08-13

基金资助

中国水产科学研究院中央级公益性科研院所基本科研业务费专项资金资助项目(2025JBFM13)

中国水产科学研究院中央级公益性科研院所基本科研业务费专项资金资助项目(CAFS 2023TD09)

国家特色淡水鱼产业技术体系(CARS-46)

Effects of Feeding Different Prey Fish during Initial Feeding Stage on Growth, Survival, Digestive Physiology and Antioxidant Capacity of Mandarin Fish (Siniperca chuatsi) Larvae

  • PENG Di , 1, 2 ,
  • DONG Lixue 1 ,
  • CHENG Ke 1 ,
  • WEN Hua 1 ,
  • ZHU Fengyue , 1, * ,
  • JIANG Ming , 1, *
Expand
  • 1 Yangtze River Fisheries Research Institute, Chinese Academy of Fishery Sciences, Wuhan 430223, China
  • 2 Freshwater Fisheries Research Center, Chinese Academy of Fishery Sciences, Wuxi 214062, China
*ZHU Fengyue, assistant professor, E-mail: ;
JIANG Ming, professor, E-mail:

Received date: 2026-01-04

  Online published: 2026-08-13

摘要

本试验旨在探究开口期摄食不同饵料鱼对鳜(Siniperca chuatsi)仔鱼生长、存活、消化生理及抗氧化能力的影响。试验设置9个养殖网箱,每个网箱初始放养孵化后3 d的鳜仔鱼2 000尾,随机分为3组,每组3个重复。各组分别以团头鲂(Megalobrama amblycephala)、鲢(Hypophthalmichthys molitrix)和赤眼鳟(Squaliobarbus curriculus)为开口饵料,进行为期12 d的养殖试验。结果表明:1)3种饵料鱼中,赤眼鳟的粗脂肪含量与能量密度最高,其C22∶6n-3(DHA)、C20∶4n-6(ARA)、赖氨酸和精氨酸含量也高于鲢和团头鲂。2)赤眼鳟组鳜仔鱼的终末全长、终末体重、增重率和特定生长率显著高于鲢组(P<0.05),存活率显著高于团头鲂组和鲢组(P<0.05)。3)赤眼鳟组鳜仔鱼的胰蛋白酶活性显著低于团头鲂组和鲢组(P<0.05),胃蛋白酶和碱性磷酸酶活性显著高于团头鲂组和鲢组(P<0.05);组织学观察提示该组鳜仔鱼的消化系统发育更为成熟,已初步形成功能性胃。4)赤眼鳟组鳜仔鱼的总抗氧化能力显著高于团头鲂组和鲢组(P<0.05),超氧化物歧化酶活性显著高于鲢组(P<0.05)。综上可知,赤眼鳟作为开口饵料营养组成更为全面,能够提升鳜仔鱼的生长性能、存活率及抗氧化能力,并促进其消化系统的早期发育。

本文引用格式

彭迪 , 董立学 , 程珂 , 文华 , 朱峰跃 , 蒋明 . 开口期摄食不同饵料鱼对鳜仔鱼生长、存活、消化生理及抗氧化能力的影响[J]. 动物营养学报, 2026 , 38(8) : 6003 -6013 . DOI: 10.12418/CJAN2026.481

Abstract

This experiment was conducted to investigate the effects of feeding different prey fish during initial feeding stage on growth, survival, digestive physiology and antioxidant capacity of mandarin fish (Siniperca chuatsi) larvae. A total of nine culture net cages were arranged in this trial, each stocked with 2 000 three-day post-hatch mandarin fish larvae. The experimental units were randomly divided into three groups with three replicates per group. Larvae in three groups were fed with blunt snout bream (Megalobrama amblycephala), silver carp (Hypophthalmichthys molitrix) and barbel chub (Squaliobarbus curriculus) as initial prey fish, respectively, for a 12-day feeding trial. The results showed as follows: 1) among the three prey fish species, barbel chub possessed the highest crude lipid content and energy density, and its contents of C22∶6n-3 (DHA), C20∶4n-6 (ARA), lysine and arginine were higher than those of silver carp and blunt snout bream. 2) The final total length, final body weight, weight gain rate and specific growth rate of mandarin fish larvae in the barbel chub group were significantly higher than those in the silver carp group (P<0.05), and the survival rate was significantly higher than that in the blunt snout bream group and silver carp group (P<0.05). 3) The trypsin activity of mandarin fish larvae fed barbel chub was significantly lower than that of the blunt snout bream group and silver carp group (P<0.05), while pepsin and alkaline phosphatase activities were significantly higher than those of the blunt snout bream group and silver carp group (P<0.05). Histological observation indicated that the digestive system of larvae in this group developed more maturely, with a functional stomach initially formed. 4) The total antioxidant capacity of mandarin fish larvae in the barbel chub group was significantly higher than that in the blunt snout bream group and silver carp group (P<0.05), and superoxide dismutase activity was significantly higher than that in the silver carp group (P<0.05). In conclusion, barbel chub has a more comprehensive nutritional profile when served as initial feed, which can improve the growth performance, survival rate and antioxidant capacity of mandarin fish larvae, and facilitate the early development of their digestive system.

卵生鱼类孵化后,其卵黄囊内储存的营养物质仅能支持短期存活与生长发育,一旦卵黄囊耗尽,仔鱼必须转入外源性摄食,并具备相应的消化与吸收能力,这一阶段称为开口期。开口期是鱼类早期生活史中死亡率极高的关键阶段,其存活情况直接影响种群数量和养殖成功率[1]。造成该阶段高死亡率的主要原因包括:缺乏与仔鱼口裂大小匹配的适宜饵料、饵料未能诱发仔鱼摄食反应、饵料营养组成不合理或不易消化等[2]。若仔鱼在此阶段无法有效摄食并消化营养充足的饵料,通常会在卵黄囊营养耗尽后很快陷入不可逆的饥饿状态,最终导致死亡[3]。因此,开口期被视为鱼类早期发育中最脆弱的“关键窗口期”。在仔稚鱼早期营养生理研究中,微粒饲料因营养组成可控、获取便捷而受到较多关注,相关转食策略也有若干报道[4-6]。然而在实际养殖生产中,微粒饲料成功应用案例仍然有限,仔鱼生长表现往往不理想,这可能与其早期消化系统发育不完善、酶活性较低有关[7]。因此,生物饵料在鱼类早期开口阶段仍发挥着不可替代的作用。
鳜(Siniperca chuatsi)隶属于鲈形目(Perciformes)、鳜科(Sinipercidae)、鳜属(Siniperca),广泛分布于我国黑龙江、长江及珠江流域,其肉质鲜美、无肌间刺,是我国重要的经济鱼类。2024年全国养殖产量已达53.98万t,全产业链价值约700亿元[8]。作为一种典型肉食性鱼类,鳜在开口期仅摄食活饵料鱼,此时其消化系统尚未完全成熟,胃功能尚处于初步发育阶段[9],因此适宜的饵料对其变态发育至关重要。当前针对鳜开口饵料的相关研究较为有限。Wang等[10]报道鳜仔鱼在开口期可摄食卤虫无节幼体,但可能因营养不足或消化酶分泌不够,仔鱼生长与存活效果不理想。因此,现阶段提高鳜仔鱼养殖效率的关键途径之一仍是优化活饵料鱼的选择。现有研究多聚焦于消化系统发育较为完善的鳜幼鱼阶段。蒋金山[11]以团头鲂(Megalobrama amblycephala)、麦瑞加拉鲮(Cirrhinus mrigala Hamilton)、鲤(Cyprinus carpio)、彭泽鲫(Carassius auratus var. Pengzesis)、赤眼鳟(Squaliobarbus curriculus)5种鱼类作为饵料鱼开展对比试验,指出饵料鱼自身营养组成是造成鳜幼鱼生长差异的主要原因;叶金明等[12]从生物学特性、化学组成及能量密度等角度,证实了麦瑞加拉鲮、赤眼鳟可作为鳜配套饵料鱼。但鳜幼鱼口裂更大、摄食选择能力更强,与消化系统尚未健全的开口期仔鱼在生理状态上存在明显差异。在实际生产中,团头鲂常作为鳜仔鱼的开口饵料[13],也有报道指出赤眼鳟可用于鳜反季节人工繁殖育苗[14],北方养殖区域也曾使用鲤水花投喂开口鳜仔鱼[15]。目前仍缺乏针对鳜仔鱼开口期摄食不同饵料鱼对其生长、发育及消化酶活性影响的系统比较。基于此,本试验选取鲢(Hypophthalmichthys molitrix)、团头鲂、赤眼鳟3种饵料鱼作为开口饵料投喂鳜仔鱼,系统对比3种饵料鱼对鳜仔鱼生长、存活、消化酶活性及抗氧化能力的影响,通过测定饵料鱼的营养成分,并结合仔鱼生长与消化生理指标筛选适宜的开口饵料,为鳜苗种健康培育提供理论与实践依据。

1 材料与方法

1.1 试验鱼来源与培育

本试验所用鳜亲本及3种饵料鱼(鲢、团头鲂和赤眼鳟)亲本均取自中国水产科学研究院长江水产研究所梁子湖试验场。通过人工催产、受精获得同步孵化的受精卵。鳜受精卵置于室内孵化系统中孵化,水温控制在23~26 ℃。选取孵化出的健康鳜仔鱼作为试验对象,仔鱼初始全长为(4 522.18±126.36) μm,初始体重为(3.34±0.28) mg。

1.2 试验设计与管理

本试验方案经中国水产科学研究院长江水产研究所实验动物福利伦理委员会批准,批准号为YFI2025PD03。养殖试验在中国水产科学研究院长江水产研究所梁子湖试验场室内循环水养殖系统中进行。试验共设置9个养殖网箱(60 cm×40 cm×50 cm),各网箱单独放置于圆形养殖桶内,每个网箱初始放养3 DPH(孵化后天数)的鳜仔鱼2 000尾。根据投喂的饵料鱼种类,将网箱随机分为3组,每组3个重复。试验期间对饵料鱼亲本进行3次同步人工催产,分别于鳜仔鱼3、7和11 DPH时向对应网箱中投喂新孵化的鲢、团头鲂和赤眼鳟仔鱼作为开口饵料。试验期12 d。为保证饵料充足,每天抽样监测各网箱内饵料鱼密度并及时补投,使饵料鱼数量始终高于鳜仔鱼。试验全程不另对饵料鱼投喂任何饵料。每天分别于08:00、11:00、14:00、17:00、20:00和23:00定时观察并记录鳜仔鱼的摄食与死亡情况,及时取出死亡个体并计数,同时清除残余粪便。试验期间控制水温为24~26 ℃,溶解氧浓度≥5.0 mg/L,pH为7.2~7.6,采用自然光照周期。

1.3 饵料鱼样品采集与指标测定

1.3.1 饵料鱼全长

随机抽取3种饵料鱼初孵仔鱼各100尾,采用生物显微镜(IRX50,宁波舜宇仪器有限公司)及其配套图像分析系统测量全长。

1.3.2 饵料鱼营养成分

取每批次1~5 DPH的饵料鱼仔鱼样本(混合取样),冷冻干燥后进行营养成分分析测定。参照AOAC(2023)[16]采用凯氏定氮法(AOAC 984.13)测定粗蛋白质含量,采用索氏抽提法(AOAC 920.39)测定粗脂肪含量。根据下方公式计算能量密度:

能量密度(kJ/g)=MP×23.6(kJ/g)+ML×39.5(kJ/g)。

式中:MPML分别为鱼体粗蛋白质和粗脂肪含量(干物质基础)。
采用GC9720 Plus气相色谱仪(浙江福立分析仪器有限公司),配备RBX-FAME极性毛细管柱(100 m×0.25 mm×0.25 μm)测定脂肪酸含量,前处理流程:称取饵料鱼样品,加入氯仿-甲醇混合液(体积比2∶1),匀浆振荡提取2 h后过滤;滤液中加入去离子水,振荡、离心后取下层有机相,40 ℃蒸干;残渣加入1 mL正己烷溶解,再添加1 mL 0.4 mol/L氢氧化钾-甲醇溶液,于40 ℃皂化及甲酯化30 min;反应结束后加入2 mL水,离心分离,取正己烷层上机进行脂肪酸甲酯分析。脂肪酸通过对比脂肪酸甲酯混合标准品(Sigma-Aldrich,美国)进行定性,各脂肪酸含量采用峰面积归一化法计算。采用A100氨基酸分析仪(MembraPure,德国)测定氨基酸含量。

1.3.3 饵料鱼消化酶活性

取每批次1~5 DPH的饵料鱼样本(混合取样),按质量体积比1∶10加入4 ℃生理盐水,匀浆后于4 ℃、3 000×g条件下离心10 min,吸取上清液待测。使用南京建成生物工程研究所生产的试剂盒测定样品总蛋白浓度以及胰蛋白酶、脂肪酶和淀粉酶活性。

1.4 鳜仔鱼样品采集与指标测定

1.4.1 生长性能

鳜仔鱼培育至15 DPH试验结束,从每个网箱随机取60尾仔鱼,经50 mg/L MS-222麻醉处理后,在生物显微镜(IRX50,宁波舜宇仪器有限公司)下测量仔鱼全长,采用万分之一分析天平称量体重。生长性能相关指标计算公式如下:

增重率(WGR,%)=100×(Wt-W0)/W0;

特定生长率(SGR,%/d)=100×

(lnWt-lnW0)/t;

存活率(SR,%)=100×Nt/N0

式中:W0Wt分别为初始体重和终末体重(mg);N0Nt分别为初始尾数和终末尾数;t为试验天数。

1.4.2 消化相关酶活性及抗氧化指标

试验结束后,从每个网箱随机取60尾鳜仔鱼,均分为3份,每份20尾制备混合样品。样品按质量体积比1∶10加入4 ℃生理盐水,匀浆后于4 ℃、3 000×g条件下离心10 min,吸取上清液待测。采用南京建成生物工程研究所生产的试剂盒测定消化酶(胃蛋白酶、胰蛋白酶、脂肪酶、淀粉酶)、肠道刷状缘标志酶[碱性磷酸酶(AKP)]活性及抗氧化指标[总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)活性、丙二醛(MDA)含量],并用考马斯亮蓝法测定样品总蛋白浓度。

1.4.3 消化系统形态结构

试验结束后,从每个网箱随机取20尾鳜仔鱼,采用4%多聚甲醛固定24 h,经梯度脱水、透明、石蜡包埋后制作5 μm切片,进行苏木精-伊红(HE)染色,利用生物显微镜(IRX50,宁波舜宇仪器有限公司)观察仔鱼消化系统形态结构并采集图像。

1.5 数据统计分析

饵料鱼营养成分及消化酶活性指标数据结果以3批次测定平均值表示;饵料鱼全长及鳜仔鱼相关指标数据采用R studio(v4.0.3)进行单因素方差分析(one-way ANOVA),并用Duncan氏法进行组间多重比较,结果以平均值±标准差(mean±SD)表示,P<0.05表示差异显著。

2 结果与分析

2.1 饵料鱼的全长、营养成分及消化酶活性

表1可知,3种饵料鱼的全长存在显著差异(P<0.05),由高到低依次为鲢>团头鲂>赤眼鳟;粗蛋白质、粗脂肪含量及能量密度均以赤眼鳟最高。
表1 饵料鱼的全长、粗蛋白质和粗脂肪含量及能量密度

Table 1 Total length, CP, EE contents and energy density of prey fish

项目
Items
团头鲂
Blunt snout bream

Silver carp
赤眼鳟
Barbel chub
全长 Total length/μm 4 046.25±177.28b 5 671.25±425.39c 3 623.75±217.05a
粗蛋白质 CP/% DM 61.55 63.05 64.18
粗脂肪 EE/% DM 4.79 3.52 5.87
能量密度 Energy density/(kJ/g) 16.42 16.27 17.47

同行数据肩标不同字母表示差异显著(P<0.05)。

In the same row, values with different letter superscripts mean significant difference (P<0.05).

表2可知,总脂肪酸含量表现为赤眼鳟>团头鲂>鲢;赤眼鳟的n-6多不饱和脂肪酸(PUFA)及C20∶4n-6(ARA)含量高于团头鲂和鲢;团头鲂的n-3 PUFA含量与赤眼鳟相近,但赤眼鳟的C22∶6n-3(DHA)含量更高;鲢的C20∶5n-3(EPA)含量远高于赤眼鳟和团头鲂。
表2 饵料鱼的脂肪酸含量(干物质基础)

Table 2 Fatty acid contents of prey fish (DM basis)

项目
Items
团头鲂
Blunt snout bream

Silver carp
赤眼鳟
Barbel chub
C12∶0 46.71 51.61 50.10
C14∶0 22.55 21.33 19.95
C16∶0 452.98 359.18 527.14
C16∶1n-7 30.32 45.93 29.02
C18∶0 240.76 206.40 275.54
C18∶1n-9c 278.48 110.40 315.78
C18∶2n-6c 57.40 16.13 64.00
C20∶1n-9 9.79 6.66 9.61
C18∶3n-3 20.73 6.26 6.13
C20∶2n-6 10.25 2.90 9.22
C20∶3n-6 21.75 6.93 25.34
C20∶4n-6 (ARA) 90.45 65.49 141.23
C24∶0 42.56 61.75 24.79
C20∶5n-3 (EPA) 2.11 18.25 5.45
C24∶1n-9 23.00 10.47 36.77
C22∶6n-3 (DHA) 183.80 121.91 196.08
饱和脂肪酸 SFA 805.56 700.27 897.53
n-3多不饱和脂肪酸 n-3 PUFA 206.65 146.42 207.66
n-6多不饱和脂肪酸 n-6 PUFA 179.85 91.45 239.79
总脂肪酸 TFA 1 533.64 1 111.59 1 736.16

饱和脂肪酸包括C12∶0、C14∶0、C16∶0、C18∶0和C24∶0;n-3多不饱和脂肪酸包括C18∶3n-3、C20∶5n-3和C22∶6n-3;n-6多不饱和脂肪酸包括C18∶2n-6c、C20∶2n-6、C20∶3n-6和C20∶4n-6。

SFA included C12∶0, C14∶0, C16∶0, C18∶0 and C24∶0; n-3 PUFA included C18∶3n-3, C20∶5n-3 and C22∶6n-3; n-6 PUFA included C18∶2n-6c, C20∶2n-6, C20∶3n-6 and C20∶4n-6.

表3可知,赤眼鳟的总氨基酸含量最高,但3种饵料鱼的总必需氨基酸含量差异较小。单一氨基酸组分方面,赤眼鳟的赖氨酸含量最高,为47.15 mg/g;鲢与赤眼鳟的蛋氨酸含量相同,二者均高于团头鲂;精氨酸含量由高到低依次为赤眼鳟>团头鲂>鲢。
表3 饵料鱼的氨基酸含量(干物质基础)

Table 3 Amino acid contents of prey fish (DM basis)

项目
Items
团头鲂
Blunt snout bream

Silver carp
赤眼鳟
Barbel chub
必需氨基酸 EAAs
赖氨酸 Lys 44.87 43.25 47.15
精氨酸 Arg 33.84 31.67 36.64
缬氨酸 Val 27.16 26.46 25.02
蛋氨酸 Met 14.45 15.21 15.21
异亮氨酸 Ile 26.05 22.46 22.69
亮氨酸 Leu 52.73 49.18 46.87
苯丙氨酸 Phe 30.56 33.22 34.44
组氨酸 His 20.81 19.56 19.08
苏氨酸 Thr 32.37 30.37 31.78
非必需氨基酸 NEAAs
谷氨酸 Glu 79.15 74.64 84.18
丝氨酸 Ser 33.59 30.87 36.84
甘氨酸 Gly 42.44 41.32 49.01
脯氨酸 Pro 25.03 24.04 22.47
丙氨酸 Ala 39.03 36.02 33.41
胱氨酸 Cys 6.65 6.86 6.04
天门冬氨酸 Asp 44.52 42.27 49.24
酪氨酸 Tyr 21.43 22.41 22.23
总必需氨基酸 Total EAAs 282.83 271.38 278.88
总氨基酸 Total AAs 574.66 549.80 582.30
表4可知,赤眼鳟的胰蛋白酶活性高于团头鲂和鲢,脂肪酶活性低于团头鲂和鲢。
表4 饵料鱼的消化酶活性

Table 4 Digestive enzyme activities of prey fish

项目
Items
团头鲂
Blunt snout bream

Silver carp
赤眼鳟
Barbel chub
胰蛋白酶 Trypsin/(U/mg prot) 0.34 0.45 1.07
脂肪酶 Lipase/(U/g prot) 0.51 0.34 0.13
淀粉酶 Amylase/(U/mg prot) 0.04 0.04 0.02

2.2 不同饵料鱼对鳜仔鱼生长性能的影响

表5可知,赤眼鳟组鳜仔鱼的终末全长、终末体重、增重率和特定生长率均显著高于鲢组(P<0.05),与团头鲂组无显著差异(P>0.05);赤眼鳟组鳜仔鱼的存活率最高,显著高于团头鲂组和鲢组(P<0.05)。
表5 不同饵料鱼对鳜仔鱼生长性能的影响

Table 5 Effects of different prey fish on growth performance of mandarin fish larvae

项目
Items
组别 Groups
团头鲂
Blunt snout bream

Silver carp
赤眼鳟
Barbel chub
初始全长 ITL/μm 4 461.66±128.03 4 568.71±135.40 4 546.26±105.13
初始体重 IBW/mg 3.31±0.30 3.31±0.37 3.42±0.18
终末全长 FTL/μm 11 337.00±971.87ab 10 543.83±1 040.98a 12 126.67±1 222.42b
终末体重 FBW/mg 21.60±2.18ab 18.65±2.37a 24.65±3.60b
增重率 WGR/% 561.42±120.07ab 472.04±115.67a 619.19±82.62b
特定生长率 SGR/(%/d) 15.63±1.43ab 14.39±1.67a 16.39±0.98b
存活率 SR/% 41.00±5.57a 35.33±6.66a 52.00±2.65b

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same lowercase letter superscripts mean no significant difference (P>0.05), while with different lowercase letter superscripts mean significant difference (P<0.05). The same as below.

2.3 不同饵料鱼对鳜仔鱼消化相关酶活性的影响

表6可知,赤眼鳟组鳜仔鱼的胰蛋白酶活性显著低于团头鲂组和鲢组(P<0.05),胃蛋白酶和AKP活性显著高于团头鲂组和鲢组(P<0.05),脂肪酶活性显著高于鲢组(P<0.05)。
表6 不同饵料鱼对鳜仔鱼消化相关酶活性的影响

Table 6 Effects of different prey fish on digestion-related enzyme activities of mandarin fish larvae

项目
Items
组别 Groups
团头鲂
Blunt snout bream

Silver carp
赤眼鳟
Barbel chub
胰蛋白酶 Trypsin/(U/mg prot) 3.28±0.22b 3.78±0.57b 2.45±0.38a
胃蛋白酶 Pepsin/(U/mg prot) 14.06±3.58a 10.93±2.80a 20.05±2.59b
脂肪酶 Lipase/(U/g prot) 0.35±0.17ab 0.17±0.05a 0.48±0.08b
淀粉酶 Amylase/(U/mg prot) 0.05±0.01 0.05±0.04 0.04±0.01
碱性磷酸酶 AKP/(U/mg prot) 0.42±0.07b 0.26±0.06a 0.55±0.10c

2.4 不同饵料鱼对鳜仔鱼抗氧化指标的影响

表7可知,赤眼鳟组鳜仔鱼的T-AOC显著高于团头鲂组和鲢组(P<0.05),SOD活性显著高于鲢组(P<0.05);各组鳜仔鱼的MDA含量无显著差异(P>0.05)。
表7 不同饵料鱼对鳜仔鱼抗氧化指标的影响

Table 7 Effects of different prey fish on antioxidant indices of mandarin fish larvae

项目
Items
组别 Groups
团头鲂
Blunt snout bream

Silver carp
赤眼鳟
Barbel chub
总抗氧化能力 T-AOC/(mmol/g prot) 0.14±0.04a 0.19±0.05a 0.29±0.03b
超氧化物歧化酶 SOD/(U/mg prot) 96.08±1.30ab 87.55±6.88a 101.11±4.75b
丙二醛 MDA/(nmol/mg prot) 3.02±0.93 3.16±1.42 2.33±0.90

2.5 不同饵料鱼对鳜仔鱼胃组织形态结构的影响

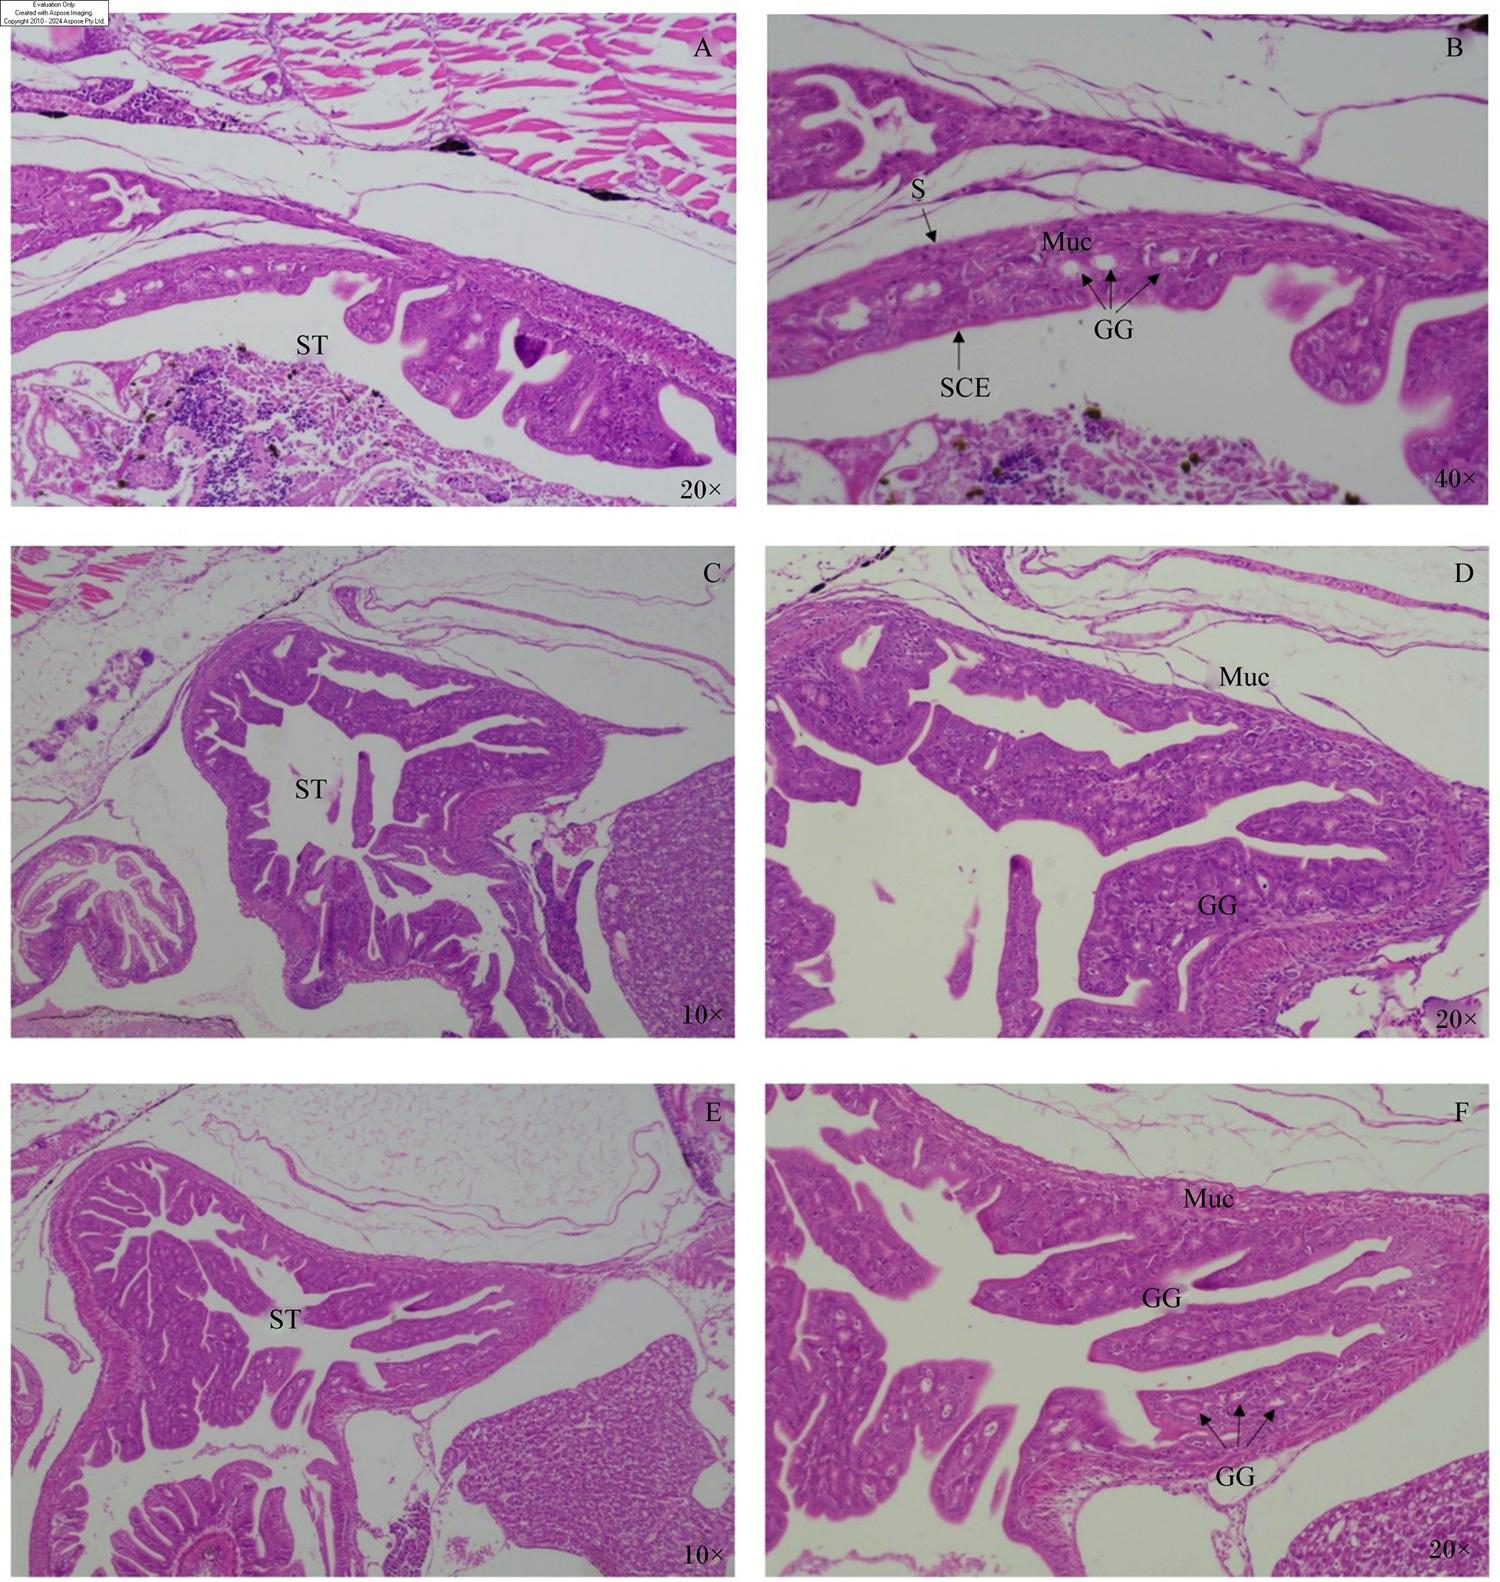
图1展示了摄食不同饵料鱼后鳜仔鱼胃组织形态结构。团头鲂组(图1-A图1-B)鳜仔鱼胃黏膜上皮为单层高柱状上皮细胞,黏膜层内可见由腺细胞构成的简单单管状胃腺;鲢组(图1-C图1-D)鳜仔鱼胃皱襞增大,胃腺数量多于团头鲂组;赤眼鳟组(图1-E图1-F)鳜仔鱼胃壁及黏膜层均较前2组明显增厚,胃腺形态更为细长。
图1 鳜仔鱼胃组织形态结构

ST:胃 stomach;Muc:肌肉层 muscular layer;S:浆膜层 serosa;GG:胃腺 gastric gland;SCE:单层高柱状上皮细胞 simple columnar epithelial cell。

A、B为团头鲂组;C、D为鲢组;E、F为赤眼鳟组。A and B represented blunt snout bream group; C and D represented silver carp group; E and F represented barbel chub group.

Fig.1 Gastric morphological structure of mandarin fish larvae

3 讨论

3.1 不同饵料鱼的营养成分及其对鳜仔鱼生长和存活的影响

本研究结果显示,摄食赤眼鳟的鳜仔鱼在15 DPH时各项生长性能指标均显著高于摄食鲢的鳜仔鱼,存活率显著高于摄食团头鲂和鲢的鳜仔鱼。鱼类的生长本质上是摄入营养素在体内代谢、转化与积累的结果。鳜在开口期仅能摄食活饵料鱼,因此饵料鱼的营养组成、消化酶活性及其逃逸能力成为影响鳜仔鱼早期生长、发育和存活的关键因素。本研究测定了3种饵料鱼的基础营养成分、氨基酸及脂肪酸含量,结果显示,赤眼鳟的粗蛋白质和粗脂肪含量及能量密度高于团头鲂和鲢。在脂肪酸含量方面,n-3 PUFA中的DHA、EPA及n-6 PUFA中的ARA对仔鱼发育至关重要,缺乏这些脂肪酸会造成仔鱼生长迟缓、存活率下降、脑发育异常及多种病理变化[17]。本研究中,赤眼鳟的ARA、DHA含量均高于团头鲂和鲢,饱和脂肪酸(SFA)、n-3 PUFA、n-6 PUFA含量也高于另外2种饵料鱼,表明赤眼鳟在脂肪酸营养上具有明显优势。在氨基酸含量方面,团头鲂的总必需氨基酸含量最高,赤眼鳟次之,鲢最低;而在关键限制性氨基酸上,赤眼鳟的赖氨酸与精氨酸含量均为最高。由此可见,团头鲂与赤眼鳟在氨基酸营养上各有优势,与鲢相比更能满足鳜仔鱼快速生长的氨基酸需求。氨基酸不仅是机体蛋白质合成的底物,在仔鱼由内源营养向外源营养转换阶段,还可提供高达60%的能量,维持适宜组织氨基酸含量对实现仔鱼最佳生长速率与营养利用效率至关重要[18]。此外,饵料鱼的适口性与逃逸能力直接影响鳜仔鱼摄食成功率,进而决定仔鱼早期存活率。本研究结果显示,鲢初孵仔鱼全长最长,团头鲂次之,赤眼鳟最短,赤眼鳟与团头鲂体型较小,更易于被鳜仔鱼捕食,这也部分解释了赤眼鳟组与团头鲂组鳜仔鱼的存活率高于鲢组的现象。而赤眼鳟组鳜仔鱼的存活率显著高于团头鲂组,则主要归因于其更优的营养组成。

3.2 不同饵料鱼对鳜仔鱼消化相关酶活性的影响

消化酶活性是评价仔鱼营养状况及消化系统发育的重要指标[19]。仔鱼早期消化道尚未发育完全,缺乏功能性胃,此时蛋白质水解主要依赖胰腺合成与分泌的胰蛋白酶和凝乳胰蛋白酶。这2种酶的活性可直接反映仔鱼的营养状况[1,20],其中胰蛋白酶被认为是仔鱼生命早期最为关键的碱性蛋白酶[1]。本研究中,15 DPH时,摄食赤眼鳟的鳜仔鱼胰蛋白酶活性最低,显著低于摄食鲢和团头鲂的鳜仔鱼;但其胃蛋白酶活性最高,显著高于其他2组鳜仔鱼。这一结果与多种鱼类发育规律相符,即在仔鱼发育后期,随着功能性胃逐渐形成,胃蛋白酶活性同步上升,胰蛋白酶活性则呈下降趋势,在真鲷(Pagrus major)[19]、鲱海鲷(Pagellus erythrinus)[21]及Peng等[22]针对鳜仔鱼开展的研究中均有类似报道。这表明摄食赤眼鳟的鳜仔鱼消化系统发育更为提前,可能已初步形成功能性胃,蛋白质消化模式由碱性消化为主转向以酸性消化为主,进而提升机体蛋白质水解效率。本研究中胃组织切片的观察结果支持这一推断:与摄食团头鲂和鲢相比,摄食赤眼鳟的鳜仔鱼胃壁及黏膜层增厚,胃腺更细长且数量明显增多。这与以往研究一致,即鳜仔鱼胃腺约在13 DPH出现,随进一步发育,胃腺的数量、长度和宽度逐渐增加,标志着仔鱼逐步过渡到依赖胃蛋白酶进行蛋白质消化阶段[23-24]。此外,本研究中摄食赤眼鳟的鳜仔鱼脂肪酶活性最高,这可能与饵料鱼本身的营养成分有关——赤眼鳟的粗脂肪含量相对较高,可能促进了仔鱼脂肪酶的分泌或活性。除消化酶外,肠道刷状缘膜(BBM)相关功能酶的激活是消化系统趋于成熟的关键标志[25]。AKP和亮氨酸氨基肽酶主要分布于前肠上皮细胞BBM,其中AKP对脂质、葡萄糖、钙及无机磷的吸收具有促进作用,其活性可反映肠道吸收与转运能力[26-27]。本研究中,摄食鲢的鳜仔鱼AKP活性显著低于摄食另外2种饵料鱼的鳜仔鱼,提示该组仔鱼消化系统发育相对滞后,可能与饵料营养成分未能完全满足仔鱼快速发育需求有关。此外,肉食性仔鱼在开口摄食阶段自身内源性消化酶不足,需依赖饵料生物提供的外源性酶辅助消化,活饵中外源酶的消化增效作用已在多种鱼类[19,28-29]中得到验证。本研究中,赤眼鳟的胰蛋白酶活性高于其他2种饵料鱼,推测外源酶可能在早期消化过程中发挥重要作用。类似现象也见于淡水白鲑科鱼类,其从浮游动物中获取的外源酶占比可达70%~80%[30]。活饵料可能通过神经激素因子[7]或饵料在肠道碱性环境下的自溶过程[31],刺激鱼类消化酶分泌。未来仍需进一步探讨外源酶在鳜仔鱼个体发育中对食物消化的具体作用。

3.3 不同饵料鱼对鳜仔鱼抗氧化能力的影响

仔鱼处于快速生长发育阶段,高代谢率常伴随着大量活性氧(ROS)的产生[32]。若ROS累积超过机体清除能力,会引发氧化应激,导致脂质、蛋白质及DNA损伤,进而抑制生长、降低存活率[33]。因此,机体抗氧化能力是评价仔鱼健康与抗逆性的关键指标。T-AOC可反映机体整体抗氧化水平,SOD则是抵御氧化损伤的第1道防线,负责清除超氧阴离子自由基。本研究中,15 DPH时,摄食赤眼鳟的鳜仔鱼T-AOC显著高于摄食鲢和团头鲂的鳜仔鱼,SOD活性显著高于摄食鲢的鳜仔鱼,表明以赤眼鳟作为开口饵料可有效提升鳜仔鱼的抗氧化能力与自由基清除效率。这可能与饵料鱼营养组成及对鳜仔鱼生理状态的改善有关。摄食赤眼鳟的仔鱼消化系统发育更成熟、生长性能更好,提示其营养与代谢状态更佳,这为维持高水平抗氧化能力提供了基础。值得注意的是,赤眼鳟总脂肪酸及n-3 HUFA含量较高,尤其是DHA和EPA等不饱和脂肪酸分子具有多个不饱和双键,理论上更易与自由基发生反应,诱发脂质过氧化链式反应,增大机体氧化应激压力。因此,摄食赤眼鳟的鳜仔鱼可能激活或上调机体自身抗氧化防御系统,以应对潜在的氧化压力[34]。MDA是脂质过氧化的特征代谢产物,也是目前研究最广泛的氧化损伤标志物[35]。本研究中,摄食3种饵料鱼的鳜仔鱼MDA含量无显著差异,说明尽管各组仔鱼代谢强度、氧化还原状态存在差异,但机体抗氧化系统可及时清除过剩自由基,未产生明显脂质过氧化损伤。

4 结论

赤眼鳟的粗脂肪含量、能量密度及DHA、ARA等PUFA含量均高于鲢和团头鲂,可为鳜仔鱼早期发育提供全面营养供给。与摄食鲢和团头鲂相比,摄食赤眼鳟的鳜仔鱼在生长性能、存活率及抗氧化能力方面表现更优,且胃蛋白酶与AKP活性上升,已初步形成功能性胃。因此,赤眼鳟可作为鳜仔鱼开口期的优质饵料。
[1]
RØNNESTAD I, YÚFERA M, UEBERSCHÄR B, et al. Feeding behaviour and digestive physiology in larval fish:current knowledge,and gaps and bottlenecks in research[J]. Reviews in Aquaculture, 2013, 5(S1):S59-S98.

[2]
GARCIA L M B, SAYCO M J P, AYA F A. Point-of-no-return and delayed feeding mortalities in first-feeding larvae of the silver therapon Leiopotherapon plumbeus (kner) (Teleostei:Terapontidae)[J]. Aquaculture Reports, 2020, 16:100288.

[3]
MÆHRE H K, HAMRE K, ELVEVOLL E O. Nutrient evaluation of rotifers and zooplankton:feed for marine fish larvae[J]. Aquaculture Nutrition, 2013, 19(3):301-311.

[4]
CHEPKIRUI-BOIT V, NGUGI C C, BOWMAN J, et al. Growth performance,survival,feed utilization and nutrient utilization of African catfish (Clarias gariepinus) larvae co-fed Artemia and a micro-diet containing freshwater atyid shrimp (Caridina nilotica) during weaning[J]. Aquaculture Nutrition, 2011, 17(2):e82-e89.

[5]
FOSSE P J, DA CRUZ MATTOS D, CARDOSO L D, et al. Duration of co-feeding on the Nishikigoi Cyprinus carpio larvae during weaning from live to inert food in an indoor system[J]. Ciência Rural, 2018, 48(4):e20170579.

[6]
KARAKATSOULI N, BATZINA A, NTOMALIS K, et al. Co-feeding dry and live feed in first-feeding gilthead seabream:effects on functional development of the digestive system,larvae and postlarvae performance[J]. Aquaculture Nutrition, 2021, 27(6):2555-2566.

[7]
HAMRE K, YUFERA M, RØNNESTAD I, et al. Fish larval nutrition and feed formulation:knowledge gaps and bottlenecks for advances in larval rearing[J]. Reviews in Aquaculture, 2013, 5(S1):S26-S58.

[8]
中华人民共和国农业农村部渔业渔政管理局, 全国水产技术推广总站, 中国水产学会. 2025中国渔业统计年鉴[M]. 北京: 中国农业出版社, 2025.

Bureau of Fisheries and Fishery Administration,Ministry of Agriculture and Rural Affairs of the People’s Republic of China,National Fisheries Technology Extension Center,China Society of Fisheries. China fishery statistical yearbook[M]. Beijing: China Agriculture Press, 2025. (in Chinese)

[9]
DOI T. Early development of the digestive system and digestive enzyme activity of reared mandarinfish Siniperca chuatsi (Perciformes:Sinipercidae)[J]. Aquaculture Science, 2005, 53(4):425-431.

[10]
WANG Y Y, LIANG X F, HE S, et al. The potential use of Artemia for larval rearing of mandarin fish (Siniperca chuatsi)[J]. Aquaculture Reports, 2022, 25:101216.

[11]
蒋金山. 鳜饵料鱼的筛选与比较研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2015.

JIANG J S. Screening and comparative study of bait fish for mandarin fish (Siniperca chuatsi)[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2015. (in Chinese)

[12]
叶金明, 吴建开, 杨显祥, 等. 麦鲮和赤眼鳟作为鳜鱼养殖配套饵料鱼适宜性的评价[J]. 上海海洋大学学报, 2016, 25(4):569-574.

YE J M, WU J K, YANG X X, et al. Evaluation of suitability of Squaliobarbus curriculus and Cirrhinus mrigala as food fish for mandarin fish farming[J]. Journal of Shanghai Ocean University, 2016, 25(4):569-574. (in Chinese)

[13]
朱春红, 房元喧, 凌山风. 鳜鱼人工繁殖与苗种培育技术[J]. 科学养鱼, 2017(1):92.

ZHU C H, FANG Y X, LING S F. Techniques for artificial propagation and larval rearing of mandarin fish[J]. Scientific Fish Farming, 2017(1):92. (in Chinese)

[14]
叶金明, 黄桂铭. 翘嘴鳜反季节人工繁殖及苗种培育试验[J]. 上海海洋大学学报, 2014, 23(4):513-517.

YE J M, HUANG G M. Test of anti-season artificial propagation and fry culture of mandarin fish[J]. Journal of Shanghai Ocean University, 2014, 23(4):513-517. (in Chinese)

[15]
刘冰, 何登伟, 姜吉波. 利用鲤鱼水花作为鳜鱼开口饲料试验[J]. 黑龙江水产, 2002(4):32.

LIU B, HE D W, JIANG J B. Experiment on using carp fry as opening feed for mandarin fish[J]. Fisheries of Heilongjiang, 2002(4):32. (in Chinese)

[16]
LATIMER G W Jr. Official methods of analysis of AOAC international[S]. 22nd ed. New York: Oxford University Press, 2023.

[17]
TOCHER D R. Fatty acid requirements in ontogeny of marine and freshwater fish[J]. Aquaculture Research, 2010, 41(5):717-732.

[18]
TONHEIM S K, KOVEN W, RØNNESTAD I. Enrichment of Artemia with free methionine[J]. Aquaculture, 2000, 190(3/4):223-235.

[19]
TRAN NGUYEN D K, WAQALEVU V, HONDA A, et al. Early ontogenetic development,digestive enzymatic activity and gene expression in red sea bream (Pagrus major)[J]. Aquaculture, 2019, 512:734283.

[20]
MATA-SOTRES J A, MOYANO F J, MARTÍNEZ-RODRÍGUEZ G, et al. Daily rhythms of digestive enzyme activity and gene expression in gilthead seabream (Sparus aurata) during ontogeny[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2016, 197:43-51.

[21]
SUZER C, SAKA Ş, FIRAT K. Effects of illumination on early life development and digestive enzyme activities in common Pandora Pagellus erythrinus L. larvae[J]. Aquaculture, 2006, 260(1/2/3/4):86-93.

[22]
PENG D, LIANG X F, WANG Y Y, et al. Introduction of Artemia nauplii during Chinese perch (Siniperca chuatsi) first feeding:effects on larvae growth,survival,gene expression and activity of critical digestive enzymes[J]. Aquaculture, 2023, 573:739619.

[23]
张琦, 曹林军, 陈铭, 等. 鳜个体发育中胃腺结构和功能发育[J]. 中国水产科学, 2023, 30(2):159-168.

ZHANG Q, CAO L J, CHEN M, et al. Structural and functional development of gastric gland in Siniperca chuatsi[J]. Journal of Fishery Sciences of China, 2023, 30(2):159-168. (in Chinese)

[24]
吴雪峰, 赵金良, 钱叶洲, 等. 鳜消化系统器官发生的组织学[J]. 动物学研究, 2007, 28(5):511-518.

WU X F, ZHAO J L, QIAN Y Z, et al. Histological study of the digestive system organogenesis for the mandarin fish,Siniperca chuatsi[J]. Zoological Research, 2007, 28(5):511-518. (in Chinese)

[25]
LIU Y T, MIAO Y Q, XU N, et al. Effects of dietary Astragalus polysaccharides (APS) on survival,growth performance,activities of digestive enzyme,antioxidant responses and intestinal development of large yellow croaker (Larimichthys crocea) larvae[J]. Aquaculture, 2020, 517:734752.

[26]
TENGJAROENKUL B, SMITH B J, CACECI T, et al. Distribution of intestinal enzyme activities along the intestinal tract of cultured Nile tilapia,Oreochromis niloticus L.[J]. Aquaculture, 2000, 182(3/4):317-327.

[27]
WANG Y, LI M, FILER K, et al. Replacement of fish oil with a DHA-rich Schizochytrium meal on growth performance,activities of digestive enzyme and fatty acid profile of pacific white shrimp (Litopenaeus vannamei) larvae[J]. Aquaculture Nutrition, 2017, 23(5):1113-1120.

[28]
RASDI N W, QIN J G, LI Y. Effects of dietary microalgae on fatty acids and digestive enzymes in copepod Cyclopina kasignete,a potential live food for fish larvae[J]. Aquaculture Research, 2016, 47(10):3254-3264.

[29]
LOH J Y, TING A S Y. Effects of potential probiotic Lactococcus lactis subsp. lactis on digestive enzymatic activities of live feed Artemia franciscana[J]. Aquaculture International, 2016, 24(5):1341-1351.

[30]
LAUFF M, HOFER R. Proteolytic enzymes in fish development and the importance of dietary enzymes[J]. Aquaculture, 1984, 37(4):335-346.

[31]
DIAZ M, MOYANO F J, GARCIA-CARRENO F L, et al. Substrate-SDS-PAGE determination of protease activity through larval development in sea bream[J]. Aquaculture International, 1997, 5(5):461-471.

[32]
POLLE A. Dissecting the superoxide dismutase-ascorbate-glutathione pathway in chloroplasts by metabolic modeling.Computer simulations as a step towards flux analysis[J]. Plant Physiology, 2001, 126(1):445-462.

[33]
MARTÍNEZ-ÁLVAREZ R M, MORALES A E, SANZ A. Antioxidant defenses in fish:biotic and abiotic factors[J]. Reviews in Fish Biology and Fisheries, 2005, 15(1):75-88.

[34]
VISIOLI F. Pharma and nutrition:crossing the Rubicon[J]. PharmaNutrition, 2013, 1(1):9.

[35]
DEL RIO D, STEWART A J, PELLEGRINI N. A review of recent studies on malondialdehyde as toxic molecule and biological marker of oxidative stress[J]. Nutrition,Metabolism and Cardiovascular Diseases, 2005, 15(4):316-328.

文章导航

/