研究论文

苯甲酸缓解黄曲霉毒素B1诱导的猪小肠上皮细胞氧化损伤

  • 段德彬 , 1 ,
  • 罗洋 1, * ,
  • 杨凯歌 1 ,
  • 刘松涛 1 ,
  • 叶慧 1 ,
  • 曹庆云 1 ,
  • 董泽敏 1 ,
  • 张常明 1 ,
  • 宾艳芳 2 ,
  • 胡友军 2 ,
  • 王伟唯 , 1, ** ,
  • 左建军 , 1, **
展开
  • 1 华南农业大学动物科学学院, 广东省动物营养调控重点实验室, 广州 510642
  • 2 广东酸动力生物科技有限公司, 清远 511500
**王伟唯,副研究员,硕士生导师,E-mail: ;
左建军,教授,博士生导师,E-mail:

*同等贡献作者

段德彬(2002—),男,广东韶关人,硕士研究生,动物营养与饲料科学专业。E-mail:

Office editor: 田艳明

收稿日期: 2026-01-08

  网络出版日期: 2026-08-13

基金资助

广州市重点研发计划项目(2025B03J0005)

广东省饲料产业技术体系(2024CXTD14)

Benzoic Acid Alleviates Oxidative Damage in Porcine Intestinal Epithelial Cells Induced by Aflatoxin B1

  • DUAN Debin , 1 ,
  • LUO Yang 1 ,
  • YANG Kaige 1 ,
  • LIU Songtao 1 ,
  • YE Hui 1 ,
  • CAO Qingyun 1 ,
  • DONG Zemin 1 ,
  • ZHANG Changming 1 ,
  • BIN Yanfang 2 ,
  • HU Youjun 2 ,
  • WANG Weiwei , 1, ** ,
  • ZUO Jianjun , 1, **
Expand
  • 1 Guangdong Provincial Key Laboratory of Animal Nutrition Control, College of Animal Science of South China Agricultural University, Guangzhou 510642, China
  • 2 Guangdong Acid Power Biotechnology Co., Ltd., Qingyuan 511500, China
**WANG Weiwei, associate professor, E-mail: ;
ZUO Jianjun, professor, E-mail:

*Contributed equally

Received date: 2026-01-08

  Online published: 2026-08-13

摘要

本试验旨在研究苯甲酸(BA)对黄曲霉毒素B1(AFB1)诱导的猪小肠上皮细胞(IPEC-J2细胞)氧化损伤的影响。试验通过检测IPEC-J2细胞活力、活性氧(ROS)含量及抗氧化指标,同时采用实时荧光定量PCR(RT-qPCR)测定核因子E2相关因子2(Nrf2)信号通路、炎症、凋亡及紧密连接相关基因表达,通过分子对接分析BA与Kelch样ECH相关蛋白1(Keap1)蛋白的结合特性,并使用Nrf2抑制剂ML385进行机制验证。结果表明:1)与对照组相比,10 μg/mL AFB1处理显著降低IPEC-J2细胞活力(P<0.05),显著提高ROS和丙二醛(MDA)含量(P<0.05),并降低总抗氧化能力(T-AOC)(P>0.05);BA(5、10、20 μg/mL)与AFB1共处理能逆转上述变化,提高细胞活力(P>0.05),显著降低ROS和MDA含量(P<0.05),且10和20 μg/mL BA显著提高T-AOC(P<0.05)。2)在分子机制上,10 μg/mL BA处理显著上调NAD(P)H醌氧化还原酶1(NQO1)、Keap1、血红素加氧酶-1(HO-1)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶1(SOD1)mRNA相对表达量(P<0.05);同时,BA处理能够显著下调炎症相关基因[核因子-κB p65(p65)、核因子-κB抑制蛋白α(IκBα)、白细胞介素-6(IL-6)、肿瘤坏死因子-α(TNF-α)和白细胞介素-1β(IL-1β)]和促凋亡基因[半胱天冬酶-3(Caspase-3)]mRNA相对表达量(P<0.05),并显著上调闭合蛋白(Occludin)和密封蛋白-1(Claudin-1)mRNA相对表达量(P<0.05)。3)分子对接显示,BA与Keap1蛋白具有较强结合亲和力;使用ML385可逆转BA的保护作用。综上所述,BA通过激活IPEC-J2细胞Nrf2信号通路发挥抗氧化作用,同时缓解细胞炎症和凋亡并增强细胞屏障功能,从而缓解AFB1引起的细胞氧化损伤。

本文引用格式

段德彬 , 罗洋 , 杨凯歌 , 刘松涛 , 叶慧 , 曹庆云 , 董泽敏 , 张常明 , 宾艳芳 , 胡友军 , 王伟唯 , 左建军 . 苯甲酸缓解黄曲霉毒素B1诱导的猪小肠上皮细胞氧化损伤[J]. 动物营养学报, 2026 , 38(8) : 6101 -6114 . DOI: 10.12418/CJAN2026.489

Abstract

This experiment was conducted to investigate the effects of benzoic acid (BA) on oxidative damage in porcine intestinal epithelial cells (IPEC-J2 cells) induced by aflatoxin B1 (AFB1). In this experiment, the cell viability, reactive oxygen species (ROS) content, and antioxidant indices in IPEC-J2 cells were measured. The expression of genes related to the nuclear factor E2-related factor 2 (Nrf2) signaling pathway, inflammation, apoptosis, and tight junctions was determined by real-time fluorescence quantitative PCR (RT-qPCR). Molecular docking analysis was conducted to investigate the binding characteristics of BA with Kelch-like ECH-related protein 1 (Keap1), and the mechanism was verified using the Nrf2 inhibitor ML385. The results showed as follows: 1) compared with the control group, treatment with 10 μg/mL AFB1 significantly reduced the IPEC-J2 cell viability (P<0.05), significantly increased the contents of ROS and malondialdehyde (MDA) (P<0.05), and reduced the total antioxidant capacity (T-AOC) (P>0.05); co-treatment with BA (5, 10 and 20 μg/mL) and AFB1 could reverse the above changes, increased the cell viability (P>0.05), significantly reduced the contents of ROS and MDA (P<0.05), and 10 and 20 μg/mL BA significantly increased T-AOC (P<0.05). 2) In terms of molecular mechanisms, treatment with 10 μg/mL BA significantly upregulated the mRNA relative expression levels of NAD(P)H-quinone oxidase-1 (NQO1), Keap1, heme oxygenase-1 (HO-1), catalase (CAT), glutathione peroxidase (GSH-Px), and superoxide dismutase 1 (SOD1) (P<0.05); meanwhile, BA treatment could significantly downregulate the mRNA relative expression levels of inflammation-related genes [nuclear factor-κB p65 (p65), nuclear factor-κB inhibitor α (IκBα), interleukin-6 (IL-6), tumor necrosis factor-α (TNF-α), and interleukin-1β (IL-1β)] and pro-apoptotic gene (Caspase-3) (P<0.05), and significantly upregulated the mRNA relative expression levels of Occludin and Claudin-1 (P<0.05). 3) Molecular docking showed that BA had a favorable binding affinity with the Keap1 protein. ML385 could reverse the protective effects of BA. In conclusion, BA exerts antioxidant effects by activating the Nrf2 signaling pathway in IPEC-J2 cells, while alleviating cellular inflammation and apoptosis and enhancing cellular barrier function, thereby alleviating cellular oxidative damage induced by AFB1.

肠道是机体营养物质和相关药物最主要的吸收器官,同时也是有毒、有害物质的主要损伤靶器官。肠道上皮被认为是保护机体免受内源性和外源性有害抗原和病原体侵害的最重要屏障,肠道上皮完整性和功能的改变会对机体产生重要影响[1]。已有研究表明,氧化应激与肠道屏障功能障碍有着密切联系[2]。在正常生理状态下,机体能够应对氧化还原系统的失衡[3]。由活性氧(reactive oxygen species,ROS)过多导致的氧化还原系统失衡,被称作氧化应激,在氧化应激状态下,过量的ROS导致脂质过氧化以及蛋白质和核酸受损,从而引起多种疾病发生[4-5],其中包括肠道功能受损[6]。断奶仔猪的健康状况直接影响生猪养殖的生产效益,而氧化应激会严重影响断奶仔猪的健康状态及产品质量[7-9]。营养调控手段是应对断奶仔猪氧化应激的重要方式。因此,寻找一种安全可靠的饲料添加剂来缓解断奶仔猪氧化应激已成为近年来的研究热点之一。
黄曲霉毒素B1(aflatoxin B1,AFB1)是一种常见于饲料中的霉菌毒素,对畜禽具有极强的毒性,会导致畜禽生长性能下降、组织器官损伤以及多种疾病的发生[10],其发挥毒性的主要途径之一是造成机体的氧化应激[11]。不同的畜禽对AFB1的易感性不同,其中猪对其易感性较强[12]。AFB1在动物体内先通过肠道被吸收后,再经血液循环到达肝脏及其他组织器官[13-14]。由此可见,AFB1会先通过损伤肠上皮细胞、抑制紧密连接蛋白表达等破坏肠道屏障完整性[15]。因此,缓解AFB1诱导的肠道氧化应激对于减轻AFB1毒性及改善仔猪生长和健康状况具有重要意义。
苯甲酸(benzoic acid,BA)又称安息香酸,是一种芳香酸类有机化合物,也是最简单的芳香酸。BA通常以游离酸、酯或其衍生物的形式广泛存在于自然界中,属于一元弱酸,但酸性强于脂肪酸[16]。BA天然存在于动植物组织中,也可由微生物产生,其可穿过细菌细胞壁和细胞膜从而发挥抑菌作用,被动物食用后可降低胃肠道pH从而刺激胃肠道内酶活性提高,有助于提高断奶仔猪固体饲粮的适口性以及生长性能[17]。Pu等[18]研究发现,饲粮添加BA可以增强仔猪的免疫能力并改善肠道屏障的完整性。Zhang等[19]研究发现,包被BA通过激活核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)信号通路有效缓解了脂多糖(lipopolysaccharide,LPS)诱导的猪小肠上皮细胞(IPEC-J2细胞)炎症和屏障功能障碍,提高了机体的抗氧化能力。
IPEC-J2细胞因其能模拟仔猪肠道功能,常被用于肠道功能以及体外抗氧化相关的研究中[20-21]。目前,尚未见关于BA缓解AFB1诱导的仔猪氧化应激方面的研究。因此,本研究选择IPEC-J2细胞作为研究对象,旨在探究BA缓解AFB1诱导IPEC-J2细胞氧化应激的作用机制,为缓解AFB1诱导的仔猪氧化应激提供一种新型策略。

1 材料和方法

1.1 试验材料

胎牛血清、DMEM高糖培养基、100×青链霉素(双抗)和0.25%胰蛋白酶消化液购于生工生物工程(上海)股份有限公司;BA购于广东酸能生物科技有限公司,纯度为99.5%;AFB1购于青岛普瑞邦生物工程有限公司(货号:MSS1003-5),纯度为(99±1)%;Nrf2抑制剂ML385(HY-100523,MedChemexpress,美国);细胞计数试剂盒-8(cell counting kit-8,CCK-8,深圳迈科斯生物科技有限公司);二甲基亚砜(dimethyl sulfoxide,DMSO,北京索莱宝科技有限公司);总抗氧化能力(total antioxidant capacity,T-AOC)测定试剂盒(A015-2-1)、超氧化物歧化酶(superoxide dismutase,SOD)分型测试盒(A001-2-2)和细胞丙二醛(malondialdehyde,MDA)测定试剂盒(A003-4-1)均购于南京建成生物工程研究所;二喹啉甲酸(bicinchoninic acid,BCA)试剂盒[赛默飞世尔科技(中国)有限公司];HiScript Ⅱ Q RT SuperMix for qPCR试剂盒、SYBR qPCR Mix试剂盒购于南京诺唯赞生物科技股份有限公司;EZ-press RNA Purification Kit试剂盒(B0004D,EZBioscience,美国);ROS检测试剂盒(S0033S,上海碧云天生物技术有限公司)。

1.2 IPEC-J2细胞培养

IPEC-J2细胞由华南农业大学动物科学学院广东省动物营养调控重点实验室提供。用含有10%胎牛血清+1%双抗+DMEM高糖培养基,将IPEC-J2细胞以2×10⁵个/mL的密度在96孔板、12孔板或6孔板中培养,待细胞生长至80%~90%时,按照试验需要,将长好的细胞根据不同规格细胞培养板需要的细胞量加入,摇匀后置于37 ℃和5%二氧化碳(CO2)细胞培养箱中培养。

1.3 细胞活力测定

将IPEC-J2细胞以2×10⁵个/mL的密度在96孔板中培养,待细胞融合度达到80%时,每孔接种100 μL的细胞液,分别用终浓度为0(对照)、1、2、5、10、20 μg/mL的BA以及终浓度为0(对照)、2.5、5.0、10.0、20.0、40.0 μg/mL的AFB1处理细胞24 h,最终选择10 μg/mL的AFB1分别与5、10、20 μg/mL的BA共处理细胞24 h;对照处理添加同等体积的DMSO而且添加量不超过培养液总体积的0.1%,各处理均设置6个重复。待处理完成后,通过CCK-8细胞活力试剂盒进行检测,向96孔细胞培养板中,每孔添加10 μL的CCK-8试剂,后将96孔板放入37 ℃恒温培养箱中反应1 h,利用全波长酶标仪检测各孔450 nm处吸光度,计算细胞活力。

1.4 ROS含量测定

将IPEC-J2细胞接种在12孔板细胞培养板中,每孔接种1 mL细胞液;分别设置对照组(CON组)、10 μg/mL AFB1组(AFB1组)、5 μg/mL BA+10 μg/mL AFB1组(LBA组)、10 μg/mL BA+10 μg/mL AFB1组(MBA组)、20 μg/mL BA+10 μg/mL AFB1组(HBA组),以及对照组(CON组)、10 μg/mL AFB1组(AFB1组)、10 μg/mL BA+10 μg/mL AFB1组(AB组)、10 μmol/L ML385+10 μg/mL AFB1组(AM组)、10 μg/mL BA+10 μmol/L ML385+10 μg/mL AFB1组(ABM组),经以上分组处理细胞后,用无血清的DMEM培养基稀释2',7'-二氯二氢荧光素二乙酸酯(DCFH-DA,终浓度10 μmol/L)后,把12孔细胞培养板放入37 ℃恒温培养箱中孵育20 min,弃去多余的探针,用磷酸盐缓冲液(phosphate buffer solution,PBS)清洗3次;利用荧光显微镜观察,并收集3个生物学重复,每个重复各选取3个不同视野的图片,使用ImageJ软件进行分析,计算相对荧光强度。

1.5 抗氧化指标测定

将IPEC-J2细胞接种到6孔板中,每孔接种2 mL;将处理好的细胞弃去培养液,使用PBS清洗2次,随后加入预热好的350 μL 1% Triton X-100裂解细胞,15 000×g、4 ℃离心10 min后取上清;先用BCA试剂盒检测细胞的蛋白浓度,再分别根据MDA、总超氧化物歧化酶(T-SOD)、SOD1、T-AOC试剂盒说明书进行操作,使用酶标仪分别检测其在532、550、550、405 nm处的吸光度,计算MDA含量、T-SOD和SOD1活性以及T-AOC。

1.6 实时荧光定量PCR(RT-qPCR)

将IPEC-J2细胞接种到12孔细胞培养板中,使用EZ-press RNA Purification Kit试剂盒提取细胞RNA,后使用HiScript Ⅱ Q RT SuperMix for qPCR试剂盒将提取的RNA反转录为cDNA,使用实时荧光定量基因扩增仪对各组cDNA进行目的基因扩增。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,各组目的基因mRNA相对表达量采用2-ΔΔCt法计算。RT-qPCR中所使用的引物序列见表1
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
GenBank登录号
GenBank accession No.
甘油醛-3-磷酸脱氢酶
GAPDH
F:ATCGGGCGCCTGGTCA
R:GTGGAGGTCAATGAAGGGGT
NM_001206359.1
核因子E2相关因子2
Nrf2
F:AGCACAACACATCCCGTCAGAAAC
R:GAGCCTGGTTAGGAGCAATGAAGAC
XM_013984303.2
NAD(P)H醌氧化还原酶1
NQO1
F:GTGGTTTGGAGTCCCTGCTA
R:TGGCAGCGTATGTGTAAGCA
NM_001159613.1
Kelch样ECH相关蛋白1
Keap1
F:AGGCTATGTTCACCAACGGG
R:GGAGATGGAGGCCGTGTAAG
NM_001114671.1
核因子-κB抑制蛋白α
IκBα
F:TGCAGGCCACCAACTACAAT
R:TCAACAAGAGCGACACCAGG
NM_001005150.1
闭锁小带蛋白-1
ZO-1
F:ATGAGCAGGTCCCGTCCCAAG
R:GGCGGAGGCAGCGGTTTG
XM_047766890.1
闭合蛋白
Occludin
F:GACAGACTACACAACTGGCGG
R:TGTACTCCTGCAGGCCACTG
XM_005672522.3
密封蛋白-1
Claudin-1
F:CCATCGTCAGCACCGCACTG
R:CGACACGCAGGACATCCACAG
NM_001244539.1
肿瘤坏死因子-α
TNF-α
F:TTCCAGCTGGCCCCTTGAGC
R:GAGGGCATTGGCATACCCAC
NM_214022.1
白细胞介素-6
IL-6
F:TTCACCTCTCCGGACAAAAC
R:TCTGCCAGTACCTCCTTGCT
NM_214399.1
白细胞介素-1β
IL-1β
F:GAGCTGAAGGCTCTCCACCTC
R:ATCGCTGTCATCTCCTTGCAC
NM_214055.1
半胱天冬酶-3
Caspase-3
F:GGAATGGCATGTCGATCTGGT
R:ACTGTCCGTCTCAATCCCAC
NM_214131.1
B细胞淋巴瘤-2相关X蛋白
Bax
F:CCGAAATGTTTGCTGACG
R:AGCCGATCTCGAAGGAAGT
XM_003127290.5
B细胞淋巴瘤-2
Bcl-2
F:CGACTTTGCCGAGATGTCCAG
R:AACTCAAAGAAGGCCACAATCC
XM_021099593.1
过氧化氢酶
CAT
F:TTCTGGAGCCTACGTCCTGA
R:ATGTGCCTGTGTCCATCTGG
NM_214301.2
超氧化物歧化酶1
SOD1
F:GAGACCTGGGCAATGTGACT
R:CCAAACGACTTCCAGCATTT
NM_001190422.1
超氧化物歧化酶2
SOD2
F:CAACGCCCAGATCATGCAAC
R:TTTTTCAGCGCCTCCTGGTA
NM_214127.2
谷胱甘肽过氧化物酶
GSH-Px
F:CCTAGCAGTGCCTAGAGTGC
R:CGCCCATCTCAGGGGATTTT
NM_214201.1
核因子-κB p65
p65
F:CTTACACTTGGCAATCATCC
R:ATAGCGTTCAGACCTTCAC
NM_001114281.1
血红素加氧酶-1
HO-1
F:CCAACGCCACCAAGTTCAAG
R:CTGAGTGTCAGGACCCATCG
NM_001004027.1

1.7 分子对接

Kelch样ECH相关蛋白1(Keap1)信号复合物的结构从蛋白质数据库(Protein Data Bank,PDB)中获取(PDB ID:4IFJ);BA的三维结构使用Chem3D软件构建;分子对接使用CB-Dock2进行,以计算BA与Keap1信号复合物之间的结合能,结合能越低,表示小分子与蛋白质的结合越强,结合能小于-5 kcal/mol(1 kcal≈4.184 kJ)可以认为是结合比较好。

1.8 数据统计分析

试验数据先经Excel 2021进行初步整理,ROS含量使用ImageJ软件进行分析计算;采用SPSS 21.0软件进行单因素方差分析和Duncan氏多重比较,使用GraphPad Prism 10.1.2软件进行图像处理,结果数据以“平均值±标准误”形式表示,P<0.05为差异显著。

2 结果和分析

2.1 BA对AFB1诱导IPEC-J2细胞活力的影响

图1-A所示,IPEC-J2细胞在不同浓度(1~20 μg/mL)BA处理下,与对照处理相比,1 μg/mL BA处理显著降低细胞活力(P<0.05),而2~20 μg/mL BA处理对细胞活力无显著影响(P>0.05),选择5、10和20 μg/mL BA进行后续试验。如图1-B所示,与对照处理相比,IPEC-J2细胞活力在2.5~5.0 μg/mL AFB1处理下未发生显著变化(P>0.05),而在10.0~40.0 μg/mL AFB1处理下显著降低(P<0.05);基于上述结果,10 μg/mL AFB1处理可使IPEC-J2细胞活力降至约80%,且与对照处理相比具有显著差异(P<0.05),因此被选定用于后续试验。如图1-C所示,IPEC-J2细胞与5、10、20 μg/mL BA及10 μg/mL AFB1共处理24 h后,各BA处理组细胞活力相较于CON组均无显著差异(P>0.05);结果表明,BA可能具有保护IPEC-J2细胞免受AFB1损伤的潜力。
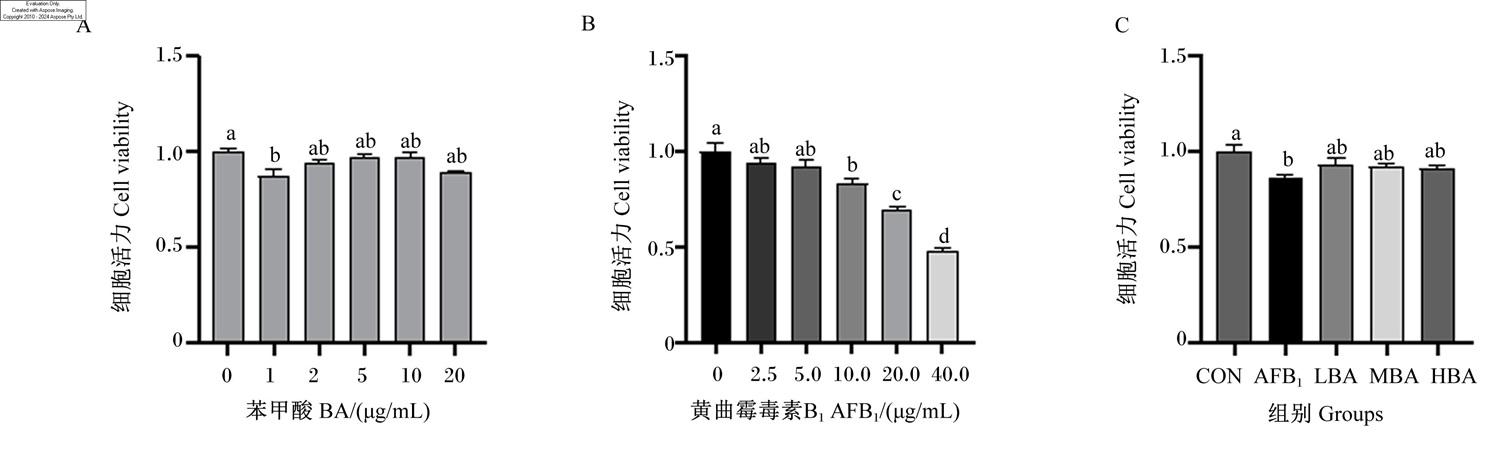
图1 BA对AFB1诱导IPEC-J2细胞活力的影响

数据柱标记不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of BA on IPEC-J2 cell viability induced by AFB1

Data columns labeled with different letters denoted significant difference (P<0.05). The same as below.

2.2 BA对AFB1诱导IPEC-J2细胞ROS含量的影响

图2所示,与CON组相比,AFB1组IPEC-J2细胞ROS含量显著提高(P<0.05);与AFB1组相比,各BA处理组ROS含量均显著降低(P<0.05)。这表明AFB1诱导IPEC-J2细胞产生过量的ROS,导致肠上皮细胞氧化损伤;BA抑制AFB1引起的ROS过量产生,从而缓解肠上皮细胞的氧化损伤。
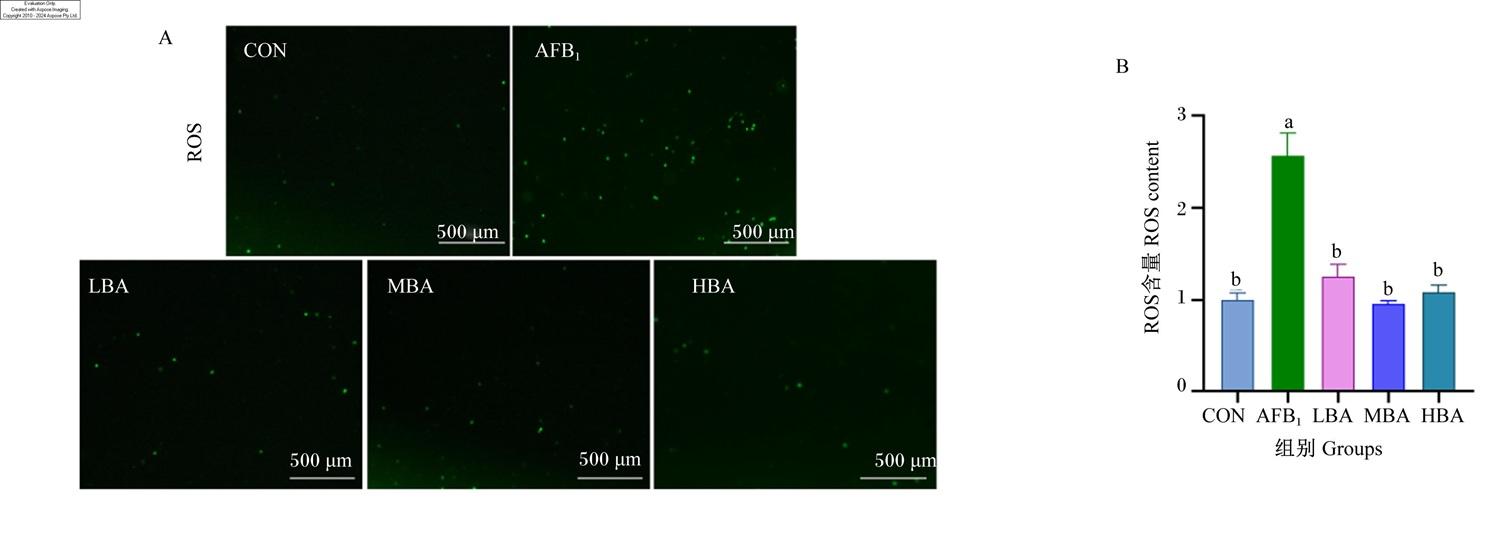
图2 BA对AFB1诱导IPEC-J2细胞ROS含量的影响

A:荧光显微镜图像 fluorescence microscopy image (40×);B:ROS含量 ROS content。

ROS:活性氧 reactive oxygen species。

Fig.2 Effects of BA on ROS content in IPEC-J2 cells induced by AFB1

2.3 BA对AFB1诱导IPEC-J2细胞抗氧化指标的影响

图3所示,与CON组相比,AFB1组IPEC-J2细胞MDA含量显著提高(P<0.05);与AFB1组相比,各BA处理组MDA含量显著降低(P<0.05)。与CON组相比,AFB1组T-AOC有所降低,但差异不显著(P>0.05);与AFB1组相比,MBA组和HBA组T-AOC显著提高(P<0.05),且T-AOC随BA浓度的提高而逐渐提高。与CON组相比,AFB1组T-SOD活性无显著差异(P>0.05);与AFB1组相比,各BA处理组T-SOD活性均无显著差异(P>0.05)。与CON组相比,AFB1组SOD1活性有所提高,但差异不显著(P>0.05);与AFB1组相比,各BA处理组SOD1活性有所提高,但差异不显著(P>0.05)。结果表明,AFB1诱导IPEC-J2细胞产生过量的MDA以及降低T-AOC,而BA逆转了这些变化,有效清除了MDA,并提高了T-AOC。
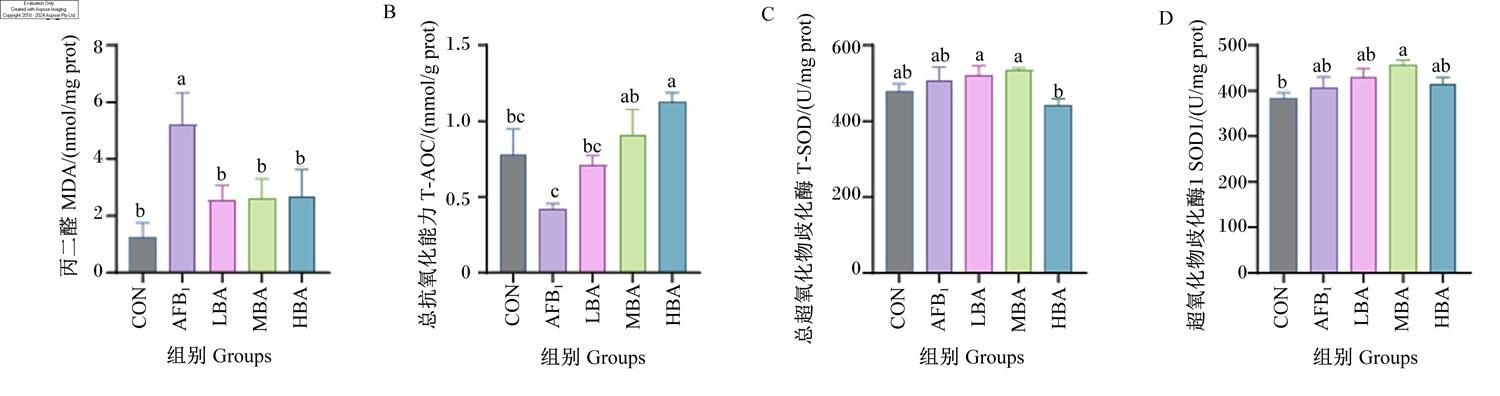
图3 BA对AFB1诱导IPEC-J2细胞抗氧化指标的影响

Fig.3 Effects of BA on antioxidant indices in IPEC-J2 cells induced by AFB1

2.4 BA对AFB1诱导IPEC-J2细胞Nrf2信号通路相关基因表达的影响

图4所示,与CON组相比,AFB1组IPEC-J2细胞Nrf2和SOD1 mRNA相对表达量显著提高(P<0.05),谷胱甘肽过氧化物酶(GSH-Px)mRNA相对表达量显著降低(P<0.05);各BA处理组Nrf2 mRNA相对表达量显著提高(P<0.05)。与AFB1组相比,MBA组NAD(P)H醌氧化还原酶1(NQO1)、Keap1、血红素加氧酶-1(HO-1)、过氧化氢酶(CAT)、GSH-PxSOD1 mRNA相对表达量显著提高(P<0.05)。结果表明,BA能够激活IPEC-J2细胞Nrf2信号通路,从而发挥抗氧化作用。
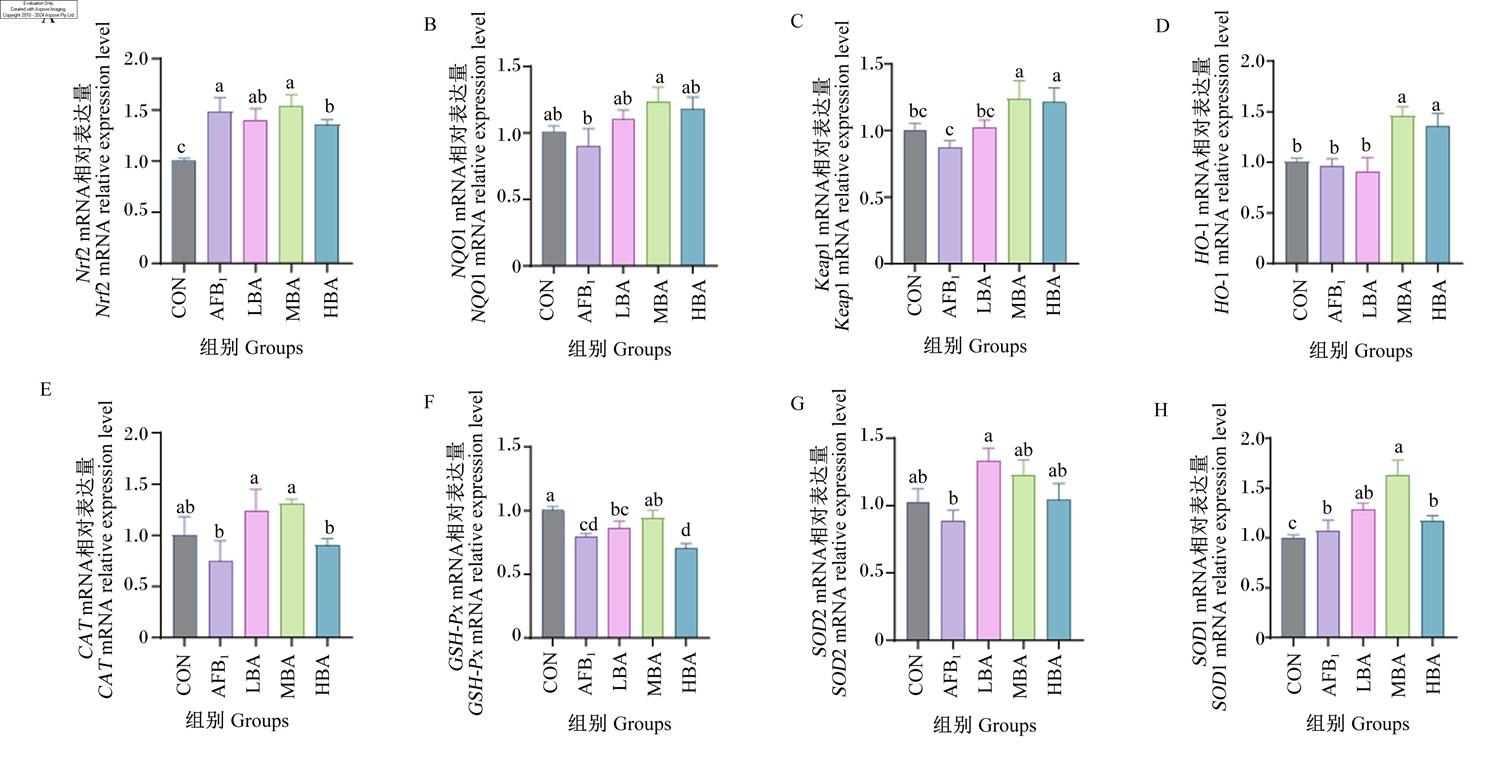
图4 BA对AFB1诱导IPEC-J2细胞Nrf2信号通路相关基因表达的影响

Fig.4 Effects of BA on expression of Nrf2 signaling pathway-related genes in IPEC-J2 cells induced by AFB1

2.5 BA对AFB1诱导IPEC-J2细胞炎症、凋亡以及紧密连接相关基因表达的影响
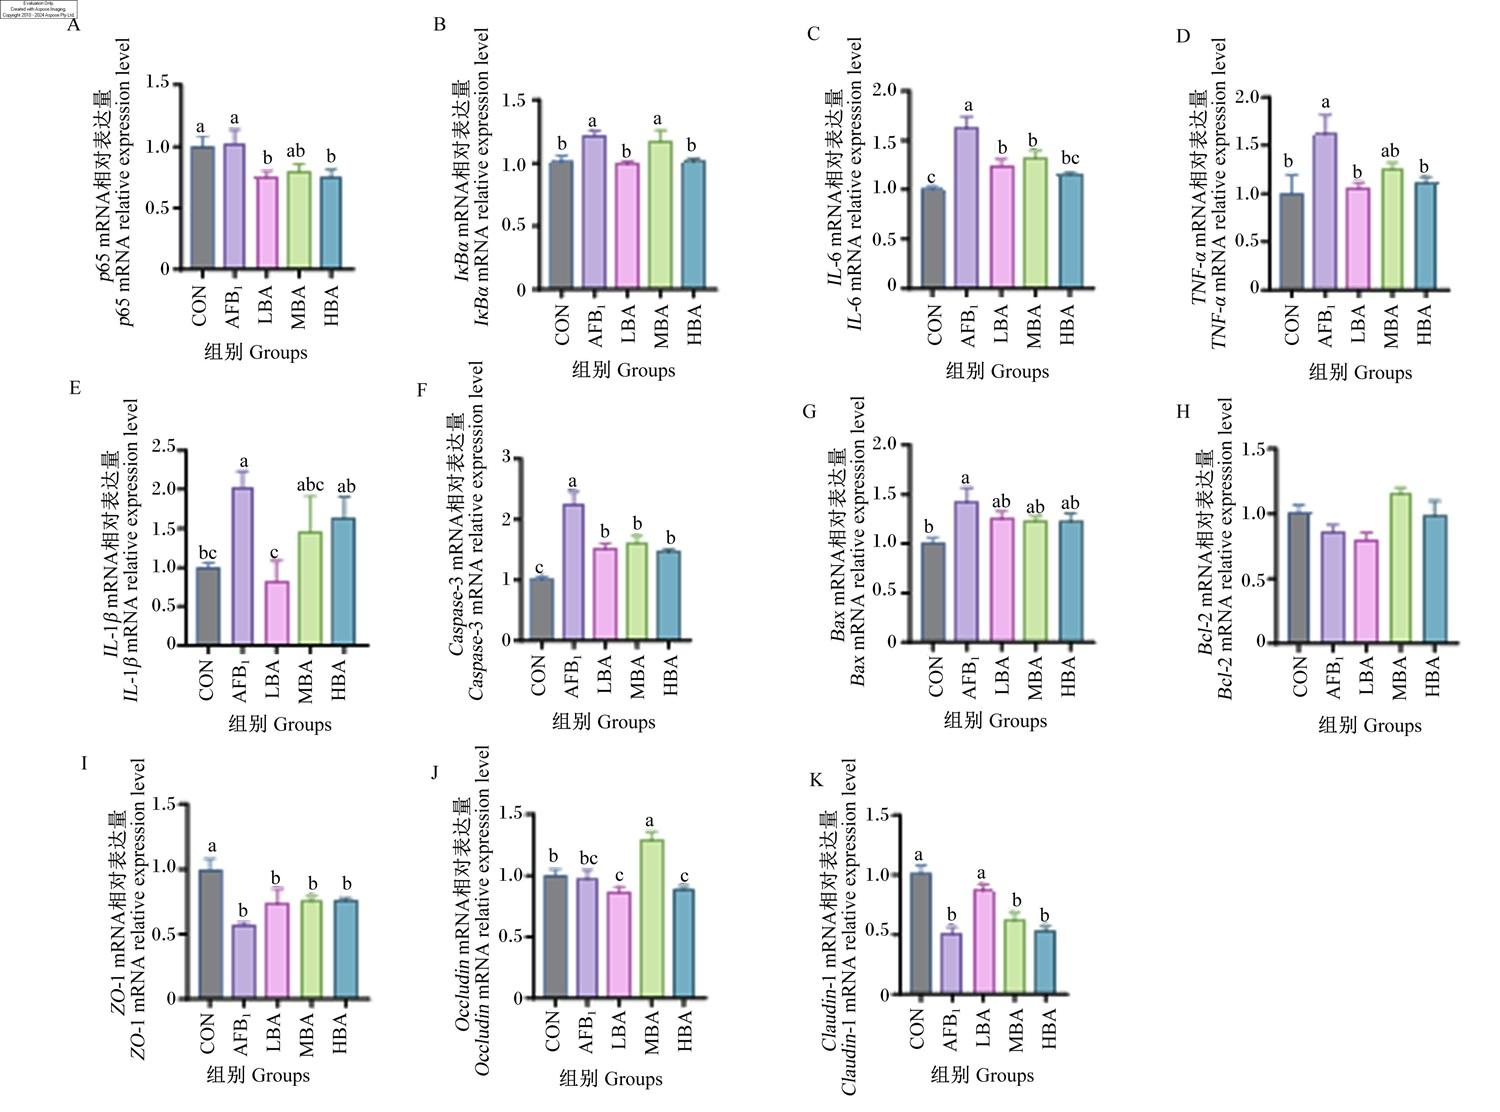
图5-A图5-E所示,与CON组相比,AFB1组IPEC-J2细胞核因子-κB抑制蛋白α(IκBα)、白细胞介素-6(IL-6)、肿瘤坏死因子-α(TNF-α)和白细胞介素-1β(IL-1β)mRNA相对表达量显著提高(P<0.05);与AFB1组相比,LBA组和HBA组核因子-κB p65(p65)、IκBαIL-6和TNF-α mRNA相对表达量显著降低(P<0.05),LBA组IL-1β mRNA相对表达量显著降低(P<0.05)。结果表明,BA可减轻AFB1诱导的IPEC-J2细胞炎症。
图5 BA对AFB1诱导IPEC-J2细胞炎症、凋亡以及紧密连接相关基因表达的影响

Fig.5 Effects of BA on expression of inflammation, apoptosis, and tight junction-related genes in IPEC-J2 cells induced by AFB1

图5-F图5-H所示,与CON组相比,AFB1组半胱天冬酶-3(Caspase-3)和B细胞淋巴瘤-2相关X蛋白(Bax)mRNA相对表达量显著提高(P<0.05);与AFB1组相比,各BA处理组Caspase-3 mRNA相对表达量显著降低(P<0.05)。结果表明,BA能够抑制AFB1诱导的IPEC-J2细胞凋亡相关基因的表达。
图5-I图5-K所示,与CON组相比,AFB1组闭锁小带蛋白-1(ZO-1)和密封蛋白-1(Claudin-1)mRNA相对表达量显著降低(P<0.05);与AFB1组相比,MBA组闭合蛋白(Occludin)mRNA相对表达量显著提高(P<0.05),LBA组Claudin-1 mRNA相对表达量显著提高(P<0.05)。结果表明,BA可以减少AFB1诱导的IPEC-J2细胞紧密连接损伤,有助于维持IPEC-J2细胞间紧密连接的稳定性,提高IPEC-J2细胞的屏障保护功能。

2.6 ML385逆转BA对AFB1诱导IPEC-J2细胞ROS的清除作用

图6所示,与CON组相比,AFB1组IPEC-J2细胞ROS含量显著提高(P<0.05);与AFB1组相比,AB组ROS含量显著降低(P<0.05);与AB组相比,ABM组ROS含量显著提高(P<0.05)。这表明ML385有效逆转了BA对AFB1诱导的IPEC-J2细胞内ROS的清除作用。
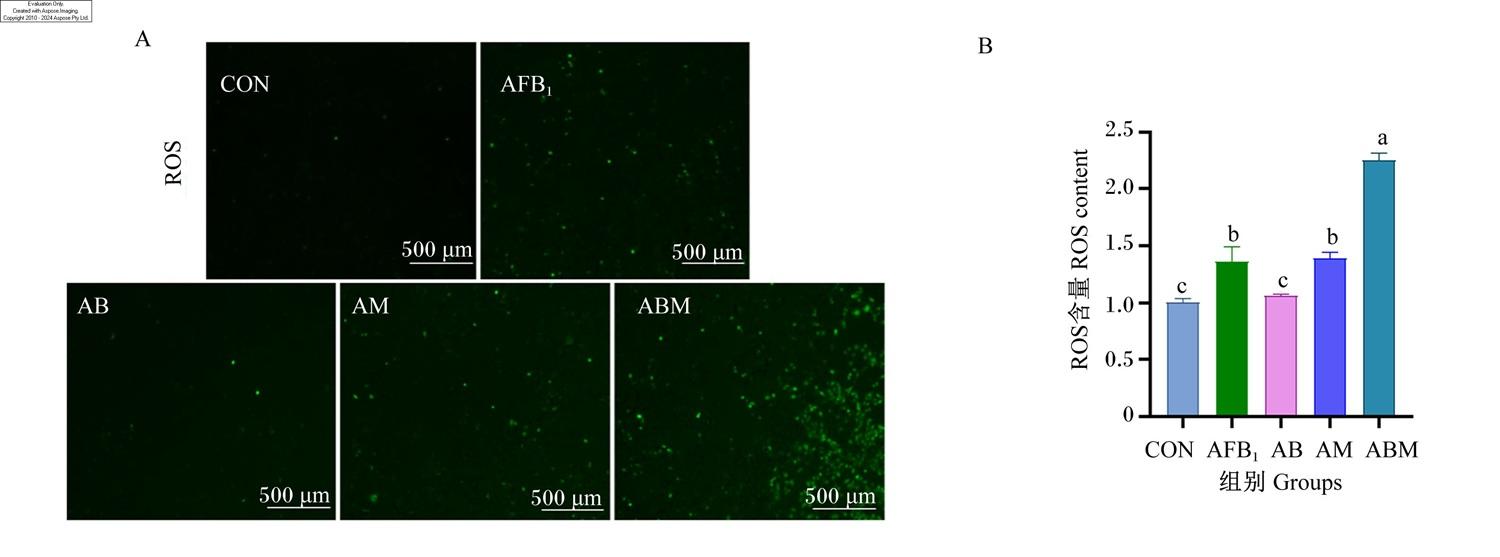
图6 ML385逆转BA对AFB1诱导IPEC-J2细胞ROS的清除作用

A:荧光显微镜图像 fluorescence microscopy image (40×);B:ROS含量 ROS content。

ROS:活性氧 reactive oxygen species。

Fig.6 ML385 reversed ROS-scavenging effects of BA in IPEC-J2 cells induced by AFB1

2.7 BA通过激活Nrf2信号通路缓解AFB1诱导的IPEC-J2细胞氧化损伤
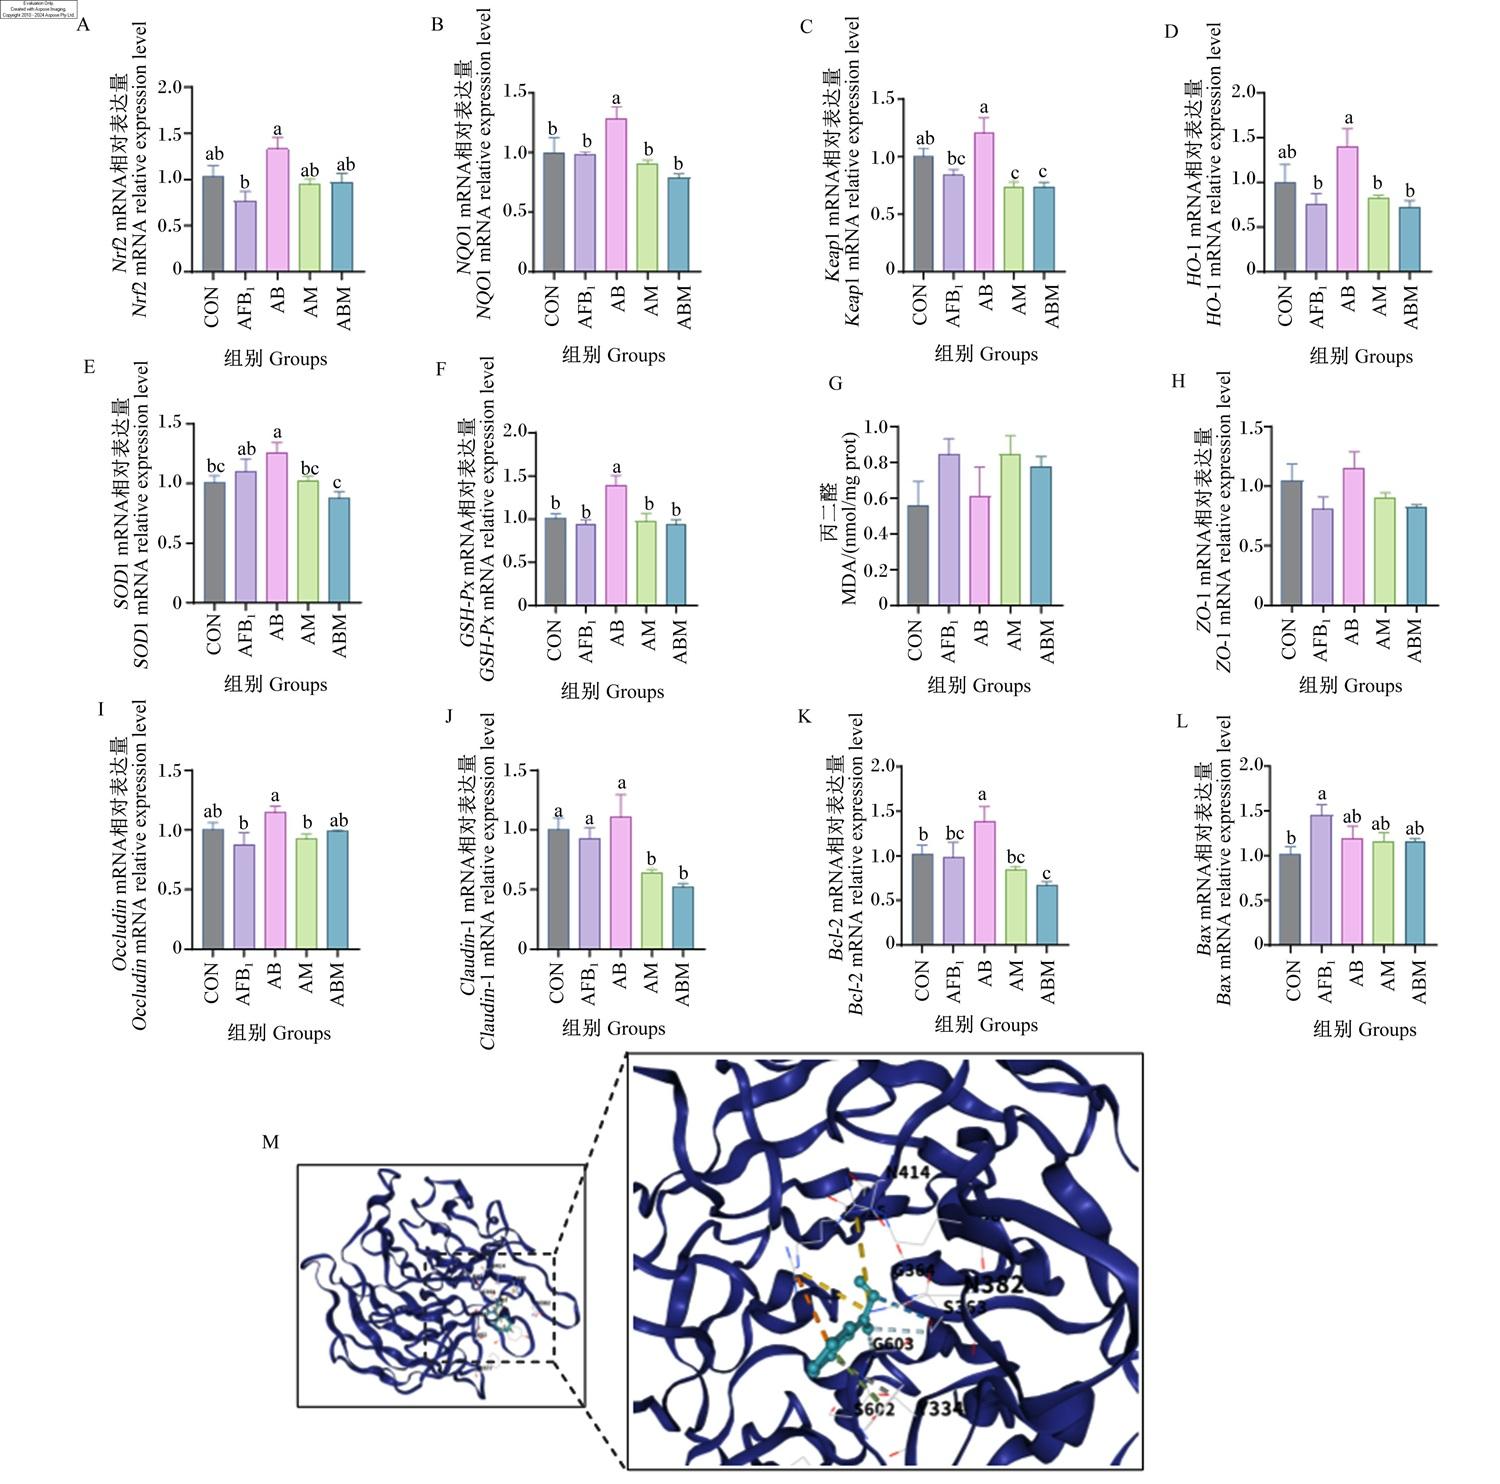
图7-A图7-F所示,与AB组相比,ABM组IPEC-J2细胞NQO1、Keap1、HO-1和GSH-Px mRNA相对表达量显著降低(P<0.05)。结果表明,ML385逆转BA通过激活Nrf2信号通路发挥抗氧化作用。
图7 BA通过激活Nrf2信号通路缓解AFB1诱导的IPEC-J2细胞氧化损伤

Fig.7 BA alleviated AFB1-induced oxidative damage in IPEC-J2 cells by activating Nrf2 signaling pathway

图7-G图7-L所示,与AB组相比,ABM组Claudin-1和B细胞淋巴瘤-2(Bcl-2)mRNA相对表达量显著降低(P<0.05)。如图7-M所示,分子对接分析显示,BA与Keap1信号复合物之间存在强相互作用,对接结合能为-5.3 kcal/mol,提示BA在对接口袋中可能与Keap1信号复合物形成稳定连接。以上结果表明,ML385可消除BA保护IPEC-J2细胞屏障和抑制其细胞凋亡的作用。

3 讨论

前人研究发现,BA能够改善猪的生长性能和营养物质表观消化率,抑制病原微生物并维持肠道微生态平衡[22-25]。此外,也有研究表明,饲粮添加5 000 mg/kg BA可提高肠道对营养物质的消化吸收能力,同时改善肠道抗氧化能力和形态结构,从而提高仔猪的生长性能[26]。然而,目前关于BA抗氧化作用的机制并不清晰。鉴于IPEC-J2细胞模型与动物模型具有一定可比性且常被用于猪肠道健康方面的研究[27],本研究选择IPEC-J2细胞模型探究BA对AFB1诱导的肠道氧化损伤的缓解作用。
为探究BA抗氧化作用的具体机制,首先需明确氧化应激的危害。在正常情况下,机体ROS维持在较低的水平[28];而在氧化应激状态下,ROS和MDA含量[29]会大大增加,对细胞中的DNA和蛋白质造成损伤[30],并造成细胞抗氧化系统失衡,导致相关抗氧化酶基因(T-SODCATGSH-Px等)表达下调[31-32]。研究表明,AFB1通过大量增加体内ROS导致氧化还原系统失衡,从而引起氧化应激[33]并降低机体抗氧化能力[34]。Li等[35]研究表明,大豆苷元可通过提高断奶仔猪血浆SOD和CAT活性从而提高机体抗氧化能力并改善其生长性能。本研究结果表明,BA能够显著降低IPEC-J2细胞ROS和MDA含量,提高T-AOC从而提高IPEC-J2细胞的抗氧化能力。
基于上述发现,BA在细胞层面展现的抗氧化作用对于维持肠道健康具有重要意义。肠道是机体消化吸收的核心场所,更是抵御病原感染的前线,对维持正常代谢和免疫功能至关重要[36]。肠道氧化还原状态对肠道的上述功能具有重要影响[37]。AFB1不仅能诱导肠道绒毛萎缩、绒隐比降低及炎症等,其对畜禽的全身性毒理作用也已被广泛证实,其主要分子机制涉及脂质过氧化、氧化应激、炎症反应及细胞凋亡等[38-40]。研究表明,AFB1暴露可抑制Caco-2细胞和IPEC-J2细胞的活力以及肠道紧密连接蛋白的表达[6,41]。此外,AFB1还可上调肠道Caspase-3、半胱天冬酶-9(Caspase-9)、细胞色素P450 3A13(CYP3A13)、Baxp53的表达,下调Bcl-2基因及其靶蛋白的表达[42-43]。本研究发现,AFB1会降低IPEC-J2细胞活力,显著下调ZO-1和Claudin-1的表达,同时上调炎症相关基因(TNF-αIL-1βIκBαIL-6)以及凋亡相关基因(Caspase-3、Bax)的表达;而当添加BA共处理后,上调了IPEC-J2细胞OccludinClaudin-1的表达,并下调了炎症以及凋亡相关基因的表达,这表明BA能够有效缓解AFB1诱导的肠道上皮的屏障功能受损,同时抑制AFB1诱导的细胞炎症和凋亡。Nrf2是调控氧化应激的核心转录因子[44],在抵御氧化应激的细胞保护机制中发挥着核心作用[45]
研究发现,激活Nrf2能够通过上调紧密连接蛋白的表达,从而增强肠道屏障功能[46-48]。因此,本研究测定了细胞中Nrf2信号通路相关基因的mRNA相对表达量。研究表明,AFB1会抑制Nrf2表达,加剧氧化应激[49-51]。但也有研究表明,细胞为了对抗AFB1引起的氧化损伤,会反馈性激活Nrf2信号通路[52-53]。本研究发现,AFB1显著上调IPEC-J2细胞Nrf2 mRNA相对表达量;而添加BA共处理后,上调了NQO1、Keap1和HO-1等Nrf2信号通路相关基因的mRNA相对表达量,这表明Nrf2信号被激活,细胞抗氧化能力增强。由于细胞通常具有较好的自我调节能力,为避免抗氧化反应持续或过度增强(消耗过多资源或产生过还原状态),细胞可能通过上调Keap1等抑制因子表达以便结合新合成的Nrf2蛋白,从而避免抗氧化反应过度,使细胞恢复稳态。这种现象在其他文献中也有报道,如Jaramillo等[54]发现在某些癌细胞中,由于长期的氧化应激或Nrf2激活压力,细胞会出现Keap1表达的适应性升高或突变,该适应性变化是细胞试图重新建立稳态的表现。CB-Dock是由四川大学开发的一款蛋白质-配体盲对接服务器[55],已被用于探索不同化合物之间潜在的结合特性[56]。本研究发现,BA与Keap1蛋白之间存在较强的结合亲和力。Keap1是Nrf2的负调节因子,介导Nrf2泛素化[57]。作为亲电物质的生物传感器,当亲电试剂攻击Keap1时,Nrf2被去抑制并激活转录[45]。研究发现,某些具有抗氧化和抗炎活性的羧酸是Nrf2的潜在激活剂,可促进多种抗氧化蛋白和解毒酶的产生[58]。由此推测,BA作为一种亲电小分子羧酸,可能通过与Keap1蛋白直接结合,从而解除后者对Nrf2活性的抑制,最终激活Nrf2信号通路。本试验进一步利用Nrf2的特异性抑制剂ML385对IPEC-J2细胞进行预处理。已有研究表明,ML385可消除某些抗氧化剂(如藏红花黄素)对肠道抗氧化和屏障功能的保护作用[59]。本研究同样发现,ML385预处理可阻断BA对AFB1诱导的IPEC-J2细胞氧化应激和肠道屏障损伤的缓解作用,表明BA通过激活Nrf2信号通路缓解AFB1诱导的IPEC-J2细胞氧化损伤。未来研究可通过Western Blot检测Nrf2信号通路关键蛋白表达,并结合Nrf2过表达细胞模型,从蛋白水平和功能增益角度进一步确证BA的作用机制。综上所述,BA通过激活IPEC-J2细胞Nrf2信号通路缓解AFB1诱导的细胞氧化损伤,表明BA可作为一种抗氧化剂用于缓解AFB1诱导的肠道功能损伤,这为BA作为一种饲用抗氧化剂缓解畜禽氧化应激提供了一种新型策略。

4 结论

BA通过激活IPEC-J2细胞Nrf2信号通路发挥抗氧化作用,同时缓解细胞炎症和凋亡并增强细胞屏障功能,从而缓解AFB1引起的细胞氧化损伤。
[1]
LONDERO A S, ARANA M R, PERDOMO V G, et al. Intestinal multidrug resistance-associated protein 2 is down-regulated in fructose-fed rats[J]. The Journal of Nutritional Biochemistry, 2017, 40:178-186.

[2]
CAO S T, WANG C C, YAN J T, et al. Curcumin ameliorates oxidative stress-induced intestinal barrier injury and mitochondrial damage by promoting parkin dependent mitophagy through AMPK-TFEB signal pathway[J]. Free Radical Biology & Medicine, 2020, 147:8-22.

[3]
LAM G, APOSTOLOPOULOS V, ZULLI A, et al. NADPH oxidases and inflammatory bowel disease[J]. Current Medicinal Chemistry, 2015, 22(17):2100-2109.

[4]
SCHIEBER M, CHANDEL N S. ROS function in redox signaling and oxidative stress[J]. Current Biology, 2014, 24(10):R453-R462.

[5]
KANG Q Z, YANG C X. Oxidative stress and diabetic retinopathy:molecular mechanisms,pathogenetic role and therapeutic implications[J]. Redox Biology, 2020, 37:101799.

[6]
DIAZ DE BARBOZA G, GUIZZARDI S, MOINE L, et al. Oxidative stress,antioxidants and intestinal calcium absorption[J]. World Journal of Gastroenterology, 2017, 23(16):2841-2853.

[7]
ZHENG P, YU B, HE J, et al. Protective effects of dietary arginine supplementation against oxidative stress in weaned piglets[J]. The British Journal of Nutrition, 2013, 109(12):2253-2260.

[8]
周杨淑, 高畅, 宋丽, 等. 4-萜品醇对氧化应激断奶仔猪肺脏、脾脏、胰腺抗氧化功能的调节作用[J]. 动物营养学报, 2025, 37(1):226-235.

ZHOU Y S, GAO C, SONG L, et al. Regulation of terpinen-4-ol on antioxidant function of lungs,spleen and pancreas of weaned piglets with oxidative stress[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):226-235. (in Chinese)

[9]
廖嘉龙, 万波扬, 尹靖东, 等. 抗氧化剂在调控猪肉品质中的应用研究进展[J]. 动物营养学报, 2024, 36(4):2079-2090.

LIAO J L, WAN B Y, YIN J D, et al. Research progress on application of antioxidants in regulation of meat quality of pigs[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2079-2090. (in Chinese)

[10]
PANG V F, CHIANG C F, CHANG C C. The in vitro effects of aflatoxin B1 on physiological functions of swine alveolar macrophages[J]. Veterinary Medicine and Science, 2020, 6(4):919-925.

[11]
TIAN Y, CHE H Y, YANG J S, et al. Astaxanthin alleviates aflatoxin B1-induced oxidative stress and apoptosis in IPEC-J2 cells via the Nrf2 signaling pathway[J]. Toxins, 2023, 15(3):232.

[12]
LI C C, LIU X D, WU J, et al. Research progress in toxicological effects and mechanism of aflatoxin B1 toxin[J]. PeerJ, 2022, 10:e13850.

[13]
LI J Y, SHI M D, WANG Y B, et al. Probiotic-derived extracellular vesicles alleviate AFB1-induced intestinal injury by modulating the gut microbiota and AHR activation[J]. Journal of Nanobiotechnology, 2024, 22(1):697.

[14]
LIEW W P P, MOHD-REDZWAN S. Mycotoxin:its impact on gut health and microbiota[J]. Frontiers in Cellular and Infection Microbiology, 2018, 8:60.

[15]
TARANU I, MARIN D E, PALADE M, et al. Assessment of the efficacy of a grape seed waste in counteracting the changes induced by aflatoxin B1 contaminated diet on performance,plasma,liver and intestinal tissues of pigs after weaning[J]. Toxicon, 2019, 162:24-31.

[16]
贾焦焦. 四苯基钒氧卟啉催化氧化甲苯制备苯甲酸的研究[D]. 硕士学位论文. 太原: 中北大学, 2020.

JIA J J. Study on oxidation of toluene to benzoic acid catalyzed by VOTPP[D]. Master’s Thesis. Taiyuan: North University of China, 2020. (in Chinese)

[17]
魏凯. 复配苯甲酸和α-单月桂酸甘油酯缓解仔猪断奶应激和控制细菌性腹泻病研究[D]. 博士学位论文. 武汉: 华中农业大学, 2024.

WEI K.Study on alleviating weaning stress and controlling bacterial diarrheal disease in piglets with compound benzoic acid and 1-monolaurin[D]. Ph.D. Thesis. Wuhan: Huazhong Agricultural University, 2024. (in Chinese)

[18]
PU J N, CHEN D W, TIAN G, et al. Effects of benzoic acid,Bacillus coagulans and oregano oil combined supplementation on growth performance,immune status and intestinal barrier integrity of weaned piglets[J]. Animal Nutrition, 2020, 6(2):152-159.

[19]
ZHANG Y Y, WANG T J, HE Q, et al. Encapsulated benzoic acid alleviated LPS-induced intestinal damage via NRF2 activation[J]. Food Bioscience, 2025, 68:106704.

[20]
DONG N, LI X R, XUE C Y, et al. Astragalus polysaccharides alleviates LPS-induced inflammation via the NF-κB/MAPK signaling pathway[J]. Journal of Cellular Physiology, 2020, 235(7/8):5525-5540.

[21]
REGGI S, GIROMINI C, DELL’ANNO M, et al. In vitro digestion of chestnut and quebracho tannin extracts:antimicrobial effect,antioxidant capacity and cytomodulatory activity in swine intestinal IPEC-J2 cells[J]. Animals, 2020, 10(2):195.

[22]
TORRALLARDONA D, BADIOLA I, BROZ J. Effects of benzoic acid on performance and ecology of gastrointestinal microbiota in weanling piglets[J]. Livestock Science, 2007, 108(1/2/3):210-213.

[23]
GUGGENBUHL P, SÉON A, PIÑÓN QUINTANA A, et al. Effects of dietary supplementation with benzoic acid (VevoVitall®) on the zootechnical performance,the gastrointestinal microflora and the ileal digestibility of the young pig[J]. Livestock Science, 2007, 108(1/2/3):218-221.

[24]
GRÄBER T, KLUGE H, HIRCHE F, et al. Effects of dietary benzoic acid and sodium-benzoate on performance,nitrogen and mineral balance and hippuric acid excretion of piglets[J]. Archives of Animal Nutrition, 2012, 66(3):227-236.

[25]
DIAO H, ZHENG P, YU B, et al. Effects of dietary supplementation with benzoic acid on intestinal morphological structure and microflora in weaned piglets[J]. Livestock Science, 2014, 167:249-256.

[26]
DIAO H, GAO Z B, YU B, et al. Effects of benzoic acid (VevoVitall®) on the performance and jejunal digestive physiology in young pigs[J]. Journal of Animal Science and Biotechnology, 2016, 7(1):32.

[27]
OMONIJO F A, LIU S X, HUI Q R, et al. Thymol improves barrier function and attenuates inflammatory responses in porcine intestinal epithelial cells during lipopolysaccharide (LPS)-induced inflammation[J]. Journal of Agricultural and Food Chemistry, 2019, 67(2):615-624.

[28]
SIES H. Hydrogen peroxide as a central redox signaling molecule in physiological oxidative stress:oxidative eustress[J]. Redox Biology, 2017, 11:613-619.

[29]
UCHIDA K. 4-hydroxy-2-nonenal:a product and mediator of oxidative stress[J]. Progress in Lipid Research, 2003, 42(4):318-343.

[30]
AGOD Z, FEKETE T, BUDAI M M, et al. Regulation of type Ⅰ interferon responses by mitochondria-derived reactive oxygen species in plasmacytoid dendritic cells[J]. Redox Biology, 2017, 13:633-645.

[31]
KALINICHENKO A L, JAPPY D, SOLIUS G M, et al. Chemogenetic emulation of intraneuronal oxidative stress affects synaptic plasticity[J]. Redox Biology, 2023, 60:102604.

[32]
WEN X B, TANG S L, WAN F, et al. The PI3K/Akt-NRF2 signaling pathway and mitophagy synergistically mediate hydroxytyrosol to alleviate intestinal oxidative damage[J]. International Journal of Biological Sciences, 2024, 20(11):4258-4276.

[33]
CHENG X Y, LIANG J H, WU D, et al. Blunting ROS/TRPML1 pathway protects AFB1-induced porcine intestinal epithelial cells apoptosis by restoring impaired autophagic flux[J]. Ecotoxicology and Environmental Safety, 2023, 257:114942.

[34]
LI Z L, LIU M J, LI J, et al. Diosmetin alleviates AFB1-induced endoplasmic reticulum stressautophagy,and apoptosis via PI3K/AKT pathway in mice[J]. Ecotoxicology and Environmental Safety, 2025, 292:117997.

[35]
LI Y P, JIANG X R, CAI L, et al. Effects of daidzein on antioxidant capacity in weaned pigs and IPEC-J2 cells[J]. Animal Nutrition, 2022, 11:48-59.

[36]
王一涵, 王玉珏, 张瑞阳, 等. 植物多酚对猪肠道健康的调控作用及其作用机制[J]. 动物营养学报, 2025, 37(8):4912-4925.

WANG Y H, WANG Y J, ZHANG R Y, et al. Regulatory roles and their mechanism of action of porcine intestinal health by plant polyphenols[J]. Chinese Journal of Animal Nutrition, 2025, 37(8):4912-4925. (in Chinese)

[37]
GUO P L, WANG W J, XIANG Q, et al. Engineered probiotic ameliorates ulcerative colitis by restoring gut microbiota and redox homeostasis[J]. Cell Host & Microbe, 2024, 32(9):1502-1518.e9.

[38]
AKINRINMADE F J, AKINRINDE A S, AMID A. Changes in serum cytokine levels,hepatic and intestinal morphology in aflatoxin B1-induced injury: modulatory roles of melatonin and flavonoid-rich fractions from Chromolena odorata[J]. Mycotoxin Research, 2016, 32(2):53-60.

[39]
ZHANG S Q, PENG X, FANG J, et al. Effects of aflatoxin B1 exposure and sodium selenite supplementation on the histology,cell proliferation,and cell cycle of jejunum in broilers[J]. Biological Trace Element Research, 2014, 160(1):32-40.

[40]
李甜, 汤树生, 郝智慧, 等. 黄曲霉毒素B1的毒性效应及番茄红素的干预作用研究进展[J]. 中国兽医杂志, 2025, 61(12):119-129.

LI T, TANG S S, HAO Z H, et al. Research advances on the toxic effects of aflatoxin B1 and the intervention effects of lycopene[J]. Chinese Journal of Veterinary Medicine, 2025, 61(12):119-129. (in Chinese)

[41]
ROMERO A, ARES I, RAMOS E, et al. Mycotoxins modify the barrier function of Caco-2 cells through differential gene expression of specific claudin isoforms:protective effect of illite mineral clay[J]. Toxicology, 2016,353/354:21-33.

[42]
JEBALI R, BEN SALAH-ABBÈS J, ABBÈS S, et al. Lactobacillus plantarum alleviate aflatoxins (B1 and M1) induced disturbances in the intestinal genes expression and DNA fragmentation in mice[J]. Toxicon, 2018, 146:13-23.

[43]
张曼, 王艳慧, 李寒笑, 等. ROS积聚在黄曲霉毒素B1诱导仔猪空肠上皮细胞凋亡中的作用[J]. 中国畜牧兽医, 2024, 51(9):3857-3866.

ZHANG M, WANG Y H, LI H X, et al. Role of ROS accumulation in apoptosis of jejunal epithelial cells induced by aflatoxin B1 in piglets[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(9):3857-3866. (in Chinese)

[44]
SAHA S, BUTTARI B, PANIERI E, et al. An overview of Nrf2 signaling pathway and its role in inflammation[J]. Molecules, 2020, 25(22):5474.

[45]
MURAKAMI S, KUSANO Y, OKAZAKI K, et al. NRF2 signalling in cytoprotection and metabolism[J]. British Journal of Pharmacology, 2026, 183(1):101-114.

[46]
GUO H R, GUO H, XIE Y, et al. Mo3Se4 nanoparticle with ROS scavenging and multi-enzyme activity for the treatment of DSS-induced colitis in mice[J]. Redox Biology, 2022, 56:102441.

[47]
XIAO P, HUANG H Y, ZHAO H S, et al. Edaravone dexborneol protects against cerebral ischemia/reperfusion-induced blood-brain barrier damage by inhibiting ferroptosis via activation of Nrf-2/HO-1/GPX4 signaling[J]. Free Radical Biology and Medicine, 2024, 217:116-125.

[48]
YU T T, DENG X R, YANG X J, et al. New insights into evodiamine attenuates IPEC-J2 cells pyroptosis induced by T-2 toxin-activating Keap1-Nrf2/NF-κB signaling pathway through binding with Keap1[J]. Journal of Environmental Management, 2024, 370:122605.

[49]
JIN S J, YANG H, JIAO Y H, et al. Dietary curcumin alleviated acute ileum damage of ducks (Anas platyrhynchos) induced by AFB1 through regulating Nrf2-ARE and NF-κB signaling pathways[J]. Foods, 2021, 10(6):1370.

[50]
YE X Q, YANG Y Y, YAO Q H, et al. The ameliorative role of phlorotannin on aflatoxin B1-induced liver oxidative stress and mitochondrial injury is related to the activation of Nrf2 and Nrf1 signaling pathways in broilers[J]. Journal of Animal Science and Biotechnology, 2025, 16(1):75.

[51]
CHEN H, BUZDAR J A, RIAZ R, et al. Bovine lactoferrin alleviates aflatoxin B1 induced hepatic and renal injury in broilers by mediating Nrf2 signaling pathway[J]. Poultry Science, 2024, 103(12):104316.

[52]
LIU Y, WANG W J. Aflatoxin B1 impairs mitochondrial functions,activates ROS generation,induces apoptosis and involves Nrf2 signal pathway in primary broiler hepatocytes[J]. Animal Science Journal, 2016, 87(12):1490-1500.

[53]
MAK K K, ZHANG S M, CHELLIAN J, et al. Swietenine alleviates nonalcoholic fatty liver disease in diabetic mice via lipogenesis inhibition and antioxidant mechanisms[J]. Antioxidants, 2023, 12(3):595.

[54]
JARAMILLO M C, ZHANG D D. The emerging role of the Nrf2-Keap1 signaling pathway in cancer[J]. Genes & Development, 2013, 27(20):2179-2191.

[55]
LIU Y, GRIMM M, DAI W T, et al. CB-Dock:a web server for cavity detection-guided protein-ligand blind docking[J]. Acta Pharmacologica Sinica, 2020, 41(1):138-144.

[56]
LIU Y, YANG X C, GAN J H, et al. CB-Dock2:improved protein-ligand blind docking by integrating cavity detection,docking and homologous template fitting[J]. Nucleic Acids Research, 2022, 50(W1):W159-W164.

[57]
KOBAYASHI A, KANG M I, WATAI Y, et al. Oxidative and electrophilic stresses activate Nrf2 through inhibition of ubiquitination activity of Keap1[J]. Molecular and Cellular Biology, 2006, 26(1):221-229.

[58]
EGBUJOR M C. Carboxylic acids as activators of NRF2:antioxidant and anti-inflammatory effects[J]. Medicinal Chemistry, 2025, 21(10):1105-1126.

[59]
BIAN W C, WEI L L, WANG K X. Carthamin yellow alleviates dextran sodium sulfate-induced ulcerative colitis by repairing the intestinal barrier and activating the Nrf2/GPX4 axis[J]. International Immunopharmacology, 2024, 141:113020.

文章导航

/