研究论文

苜蓿源miR159a在脂多糖诱导的奶牛乳腺上皮细胞炎症中的作用

  • 颜永辉 ,
  • 李绍进 ,
  • 强芙蓉 ,
  • 刘肃然 ,
  • 马云 ,
  • 蔡小艳 , *
展开
  • 宁夏大学动物科技学院, 宁夏回族自治区反刍动物分子细胞育种重点实验室, 银川 750021
*蔡小艳,研究员,博士生导师,E-mail:

颜永辉(2002—),男,湖南邵阳人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-11-09

  网络出版日期: 2026-08-13

基金资助

国家自然科学基金项目(32460854)

宁夏科技厅自然科学基金重点项目(2023AAC02012)

Role of Alfalfa-Derived miR159a in Lipopolysaccharide-Induced Inflammation of Bovine Mammary Epithelial Cells

  • YAN Yonghui ,
  • LI Shaojin ,
  • QIANG Furong ,
  • LIU Suran ,
  • MA Yun ,
  • CAI Xiaoyan , *
Expand
  • Ningxia Hui Autonomous Region Key Laboratory of Ruminant Molecular Cell Breeding, College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
*professor, E-mail:

Received date: 2025-11-09

  Online published: 2026-08-13

摘要

本试验旨在探究苜蓿源miR159a(mtr-miR159a)对脂多糖(LPS)诱导的奶牛乳腺上皮细胞(bMECs)炎症反应的调控作用。在确认50 ng/μL LPS处理24 h可成功诱导bMECs炎症模型的基础上,将mtr-miR159a模拟物(mtr-miR159a mimic)或阴性对照模拟物(NC mimic)转染至细胞中,转染24 h后加入终浓度为50 ng/μL的LPS诱导炎症反应,LPS诱导24 h后,收集细胞及上清液。采用实时荧光定量PCR(qRT-PCR)检测细胞中炎症因子基因、凋亡相关基因、增殖相关基因的mRNA相对表达量;采用酶联免疫吸附测定(ELISA)法检测上清液中炎症因子含量;采用细胞计数试剂盒-8(CCK-8)法检测细胞活力;采用5-乙炔基-2'脱氧尿嘧啶核苷(EdU)法检测细胞增殖情况,计算阳性细胞百分比。此外,通过生物信息学方法预测mtr-miR159a的靶基因,并对靶基因进行GO功能注释和KEGG通路富集分析。结果表明:1)过表达mtr-miR159a可显著降低LPS诱导的bMECs中白细胞介素-8(IL-8)、白细胞介素-1β(IL-1β)和白细胞介素-6(IL-6)的mRNA相对表达量(P<0.05);过表达mtr-miR159a可显著降低LPS诱导的bMECs上清液中IL-1β和肿瘤坏死因子-α(TNF-α)含量(P<0.05),极显著降低IL-6、IL-8含量(P<0.001)。2)过表达mtr-miR159a可显著抑制LPS诱导的bMECs中凋亡相关基因半胱氨酸天冬氨酸蛋白酶3(Caspase3)和B淋巴细胞瘤-2相关X蛋白(BAX)的表达(P<0.05),显著促进抗凋亡基因B淋巴细胞瘤-2蛋白(BCL2)的表达(P<0.05),并极显著提高细胞活力(P<0.001);过表达mtr-miR159a可极显著促进LPS诱导的bMECs中增殖相关基因细胞周期蛋白D1(CCND1)、细胞周期蛋白D2(CCND2)的表达(P<0.01),显著促进增殖细胞核抗原(PCNA)的表达(P<0.05),并极显著升高阳性细胞(即增殖细胞)百分比(P<0.01)。3)mtr-miR159a候选靶基因主要参与蛋白质泛素化、细胞黏附和蛋白质转运等生物学过程,主要涉及趋化因子信号通路、白细胞跨内皮迁移、C型凝集素受体信号通路和细菌侵袭上皮细胞等信号通路;过表达mtr-miR159a可显著抑制趋化因子受体5(CCR5)的表达(P<0.05),极显著降低CXC趋化因子配体8(CXCL8)和CC趋化因子配体2(CCL2)的表达(P<0.01),并显著升高核因子-κB抑制蛋白ζ(NFKBIZ)的表达(P<0.05)。综上所述,mtr-miR159a可能通过靶向CCR5调控趋化因子信号通路关键基因表达,减轻bMECs的炎症反应、维持细胞正常增殖并抑制细胞异常凋亡,进而缓解奶牛乳腺炎的发生。

本文引用格式

颜永辉 , 李绍进 , 强芙蓉 , 刘肃然 , 马云 , 蔡小艳 . 苜蓿源miR159a在脂多糖诱导的奶牛乳腺上皮细胞炎症中的作用[J]. 动物营养学报, 2026 , 38(8) : 6133 -6149 . DOI: 10.12418/CJAN2026.491

Abstract

This study was conducted to investigate the regulatory effect of alfalfa-derived miR159a (mtr-miR159a) on the inflammatory response of bovine mammary epithelial cells (bMECs) induced by lipopolysaccharide (LPS). After confirming that 50 ng/μL LPS treatment for 24 h successfully induced inflammation in bMECs, cells were transfected with mtr-miR159a mimic or NC mimic. At 24 h post-transfection, cells were stimulated with 50 ng/μL LPS for 24 h, followed by collection of cells and supernatants. Quantitative real-time PCR (qRT-PCR) was used to measure mRNA relative expression levels of inflammatory cytokine genes, apoptosis-related genes and proliferation-related genes. Enzyme-linked immunosorbent assay (ELISA) method was employed to determine inflammatory cytokine contents in supernatants. Cell viability and proliferation were evaluated by CCK-8 and 5-ethynyl-2'-deoxyuridine (EdU) methods, respectively, with the EdU-positive cell rate being calculated. In addition, bioinformatics analysis was performed to predict the target genes of mtr-miR159a, followed by GO functional annotation and KEGG pathway enrichment analysis of the predicted targets. The results showed as follows: 1) overexpression of mtr-miR159a significantly decreased the mRNA relative expression levels of interleukin-8 (IL-8), interleukin-1β (IL-1β) and interleukin-6 (IL-6) in LPS-induced bMECs (P<0.05). Furthermore, overexpression of mtr-miR159a significantly reduced the contents of IL-1β and tumor necrosis factor-α (TNF-α) in the supernatants of LPS-induced bMECs (P<0.05), and extremely significantly decreased the contents of IL-6 and IL-8 (P<0.001). 2) Overexpression of mtr-miR159a significantly suppressed the expression of the apoptosis-related genes cysteine-aspartic protease 3 (Caspase3) and B-cell lymphoma-2-associated X protein (BAX) (P<0.05), while significantly promoted the expression of the anti-apoptotic gene B-cell lymphoma-2 (BCL2) (P<0.05), and extremely significantly enhanced cell viability (P<0.001). In addition, overexpression of mtr-miR159a extremely significantly promoted the expression of the proliferation-related genes cyclin D1 (CCND1) and cyclin D2 (CCND2) (P<0.01), significantly increased the expression of proliferating cell nuclear antigen (PCNA) (P<0.05), and extremely significantly elevated the percentage of positive cells (proliferating cells) (P<0.01). 3) The putative target genes of mtr-miR159a were mainly involved in biological processes such as protein ubiquitination, cell adhesion and protein transport, and were primarily enriched in the chemokine signaling pathway, leukocyte transendothelial migration, C-type lectin receptor signaling pathway, and bacterial invasion of epithelial cells. Overexpression of mtr-miR159a significantly suppressed the expression of CC chemokine receptor 5 (CCR5) (P<0.05), extremely significantly reduced the expression of CXC motif chemokine ligand 8 (CXCL8) and C-C motif chemokine ligand 2 (CCL2) (P<0.01), and significantly increased the expression of nuclear factor-kappaB inhibitor zeta (NFKBIZ) (P<0.05). In conclusion, mtr-miR159a may alleviate the occurrence of bovine mastitis by targeting CCR5 and thereby regulating the expression of key genes in the chemokine signaling pathway, ultimately attenuating the inflammatory response, maintaining normal cell proliferation, and inhibiting aberrant cell apoptosis in bMECs.

乳腺炎是奶牛最常见的疾病之一,也是造成奶牛养殖业经济损失的重要原因[1]。该病的发生始于病原体对乳腺上皮细胞的黏附与侵袭[2],奶牛患病后不仅会造成产奶量下降,还会导致牛乳中体细胞数显著升高[3],而体细胞数是临床与亚临床乳腺炎诊断的核心参考指标。此外,伴随乳腺炎而来的高昂治疗费用与奶牛被迫淘汰比例的攀升,会进一步加重经济负担。奶牛乳腺上皮细胞(bMECs)是病原菌感染的主要靶细胞。病原菌的毒力因子可通过刺激bMECs上的Toll样受体(TLR)或核苷酸结合寡聚化结构域样受体(NLRs),激活乳腺先天免疫系统。上述受体通过识别细菌细胞壁或细胞质中存在的病原体相关分子模式(PAMP)介导免疫反应,脂多糖(LPS)即为典型代表[4]。革兰氏阴性菌可激活bMECs中TLR4信号通路,TLR4与LPS结合后,可触发核因子-κB(NF-κB)、丝裂原活化蛋白激酶(MAPK)等炎症相关信号通路的激活[5],进而促进炎症因子白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)的表达[6]。因此,LPS常被用于构建bMECs炎症模型,以此探究大肠杆菌(E. coli)型奶牛乳腺炎的分子调控机制。
微小RNA(miRNA)是一类长度约为22个核苷酸的非编码小RNA[7],可通过与靶基因的3'非翻译区(3'UTR)结合,抑制mRNA翻译或促进mRNA降解,从而调节转录后基因的表达[8]。miRNA在细胞生长、发育、凋亡、分化、自噬以及炎症反应等过程中发挥着关键作用[9]。目前,关于miRNA调控乳腺炎分子机制的研究主要集中在内源性miRNA上,涉及外源性miRNA调控乳腺炎的研究较少。徐欣然等[10]研究表明,使用20 μg/mL LPS刺激bMECs后,外泌体中bta-miR-146a和bta-miR-224的表达水平显著降低。焦鹏[11]研究发现,miR-223是bMECs的抑炎基因,可通过靶向抑制Rho相关GTP结合蛋白B(RHOB)和NF-κB的表达缓解bMECs的炎症反应,同时促进bMECs增殖并抑制细胞凋亡。任倩倩[12]研究表明,miR-382在LPS诱导的bMECs中表达升高,并可靶向抑制G蛋白偶联受体激酶5(GRK5)的表达。
miR159是首个被证明能够调控哺乳动物乳腺功能的植物外源性miRNA[13],已被证实是8个高度保守的miRNA之一[14]。miR159家族包含miR159a、miR159b、miR159c、miR159d以及miR159e,其中miR159a和miR159b为核心成员,二者表达量占家族总表达量的90%以上[15]。miR159家族仅存在于36种植物中,属于植物特有miRNA,在植物生长发育以及生物和非生物胁迫应答过程中发挥着至关重要的作用[16]。此外,植物源miR159能够跨界调控哺乳动物的生理功能。Chin等[13]研究发现,植物源miR159不仅存在于西方人的血清中,还存在于肿瘤组织中,且与乳腺癌发生发展密切相关。有研究表明,大豆源gma-miR-159a能够通过抑制转录因子7/髓细胞增生原癌基因(TCF7/MYC)信号通路,抑制小鼠结肠肿瘤的发生[17]。本团队前期研究发现苜蓿源miR159a(mtr-miR159a)可通过靶向蛋白酪氨酸磷酸酶受体F(PTPRF)降低bMECs活力,抑制细胞增殖并促进凋亡,同时升高bMECs中α-酪蛋白和κ-酪蛋白的表达水平[18]
苜蓿已被证实具备抗炎活性。研究表明,与麦秸相比,羔羊饲粮中添加苜蓿干草可显著提高其血浆中免疫球蛋白G(IgG)含量,同时降低TNF-α含量[19]。胡雅丽[20]研究发现,饲粮中添加苜蓿草粉可显著升高田黑鸡血清中超氧化物歧化酶(SOD)与谷胱甘肽过氧化物酶(GSH-Px)的活性。Choi等[21]研究表明,苜蓿的氯仿提取物可通过下调细胞外信号调节激酶(ERK)/NF-κB信号通路传导,抑制TNF-α、IL-6、IL-1β等炎症因子的生成,从而缓解LPS诱导的炎症反应。mtr-miR159a作为潜在调控因子,可能介导苜蓿的抗炎作用,但其在奶牛乳腺炎中的调控作用尚不清楚。本研究采用LPS构建bMECs炎症模型,通过转染mtr-miR159a模拟物(mtr-miR159a mimic)及阴性对照模拟物(NC mimic),利用实时荧光定量PCR(qRT-PCR)、酶联免疫吸附测定(ELISA)、细胞计数试剂盒-8(CCK-8)和5-乙炔基-2'脱氧尿嘧啶核苷(EdU)等方法,检测bMECs中炎症因子分泌及炎症因子基因表达变化、增殖和凋亡相关基因表达变化,以及细胞的增殖能力,系统探究mtr-miR159a对LPS诱导的bMECs炎症反应的调控作用,旨在完善奶牛乳腺炎的分子调控网络,为奶牛乳腺炎的分子营养调控提供科学依据。

1 材料与方法

1.1 试验材料

本试验采用的bMECs是经本研究团队鉴定的乳腺上皮细胞系[22]

1.2 主要试剂

DMEM/F-12培养基、胰蛋白酶消化液和磷酸盐缓冲液(PBS)购自美国Cytiva公司;胎牛血清购德国BI公司;实时荧光定量检测试剂盒购自南京诺唯赞生物科技有限公司;反转录试剂盒购自日本TaKaRa公司;细胞/组织中总RNA提取试剂(Trizol法)购自南京诺唯赞生物科技有限公司;LipofectamineTM 3000转染试剂购自美国Thermo Fisher Scientific公司;CCK-8试剂盒和核酸染料购自大连美仑生物技术有限公司;EdU-488细胞增殖检测试剂盒和4%多聚甲醛购自上海碧云天生物技术股份有限公司;ELISA试剂盒购自上海佰朋生物科技有限公司;LPS购自北京索莱宝科技有限公司。

1.3 细胞复苏与培养

将bMECs从液氮罐中取出,迅速置于37 ℃恒温水浴中,通过轻轻摇动促进其快速而均匀地融化,待细胞完全融化后室温下55×g离心5 min,弃上清。用500 μL含有10%胎牛血清的DMEM/F-12培养基重悬细胞,在生长面积为55 cm2的培养皿中加入7 mL DMEM/F-12培养基,将细胞悬液接种在培养皿内并摇匀细胞后,置于37 ℃、5% CO2的培养箱中培养,此后每2 d用PBS清洗后换液,待细胞密度达90%以上后进行传代。

1.4 LPS诱导bMECs炎症模型的最佳处理时间筛选

将bMECs接种于6孔板,待细胞融合度达到70%左右时,加入终浓度为50 ng/μL的LPS溶液[23],设置0(对照)、3、6、12、24 h 5个处理时间。处理结束后,收集细胞上清液,用于检测IL-8、IL-6、IL-1β和TNF-α含量;收集细胞,用于检测炎症相关基因的mRNA相对表达量。此外,采用CCK-8法检测LPS处理0、3、6、12、24 h对bMECs活力的影响。

1.5 mtr-miR159a转染及LPS诱导处理

试验设3组:LPS组(仅LPS处理)、LPS+NC mimic组(转染NC mimic后LPS处理)及LPS+mtr-miR159a mimic组(转染mtr-miR159a mimic后LPS处理),每组设3个复孔。转染前1天将bMECs接种于6孔板,待细胞融合度达到60%~70%,使用LipofectamineTM 3000转染试剂,按照说明书所述步骤将mtr-miR159a mimic或NC mimic转染至细胞中,转染24 h后加入终浓度为50 ng/μL的LPS诱导细胞产生炎症,继续培养24 h后收集细胞及上清液。mtr-miR159a mimic及相应的阴性对照NC mimic由生工生物工程(上海)股份有限公司合成,序列信息见表1
表1 mtr-miR159a mimic和NC mimic序列信息

Table 1 Sequence information of mtr-miR159a mimic and NC mimic

项目 Items 序列 Sequence
mtr-miR159a模拟物 mtr-miR159a mimic TTTGGATTGAAGGGAGCTCTA
阴性对照模拟物 NC mimic TTGTACTACACAAAAGTACTG

1.6 mtr-miR159a靶基因预测及生物信息学分析

利用Targetscan网站(https://www.targetscan.org)和联川生物云平台(https://www.omicstudio.cn/analysis)对mtr-miR159a在bMECs中的潜在靶基因进行预测。针对预测获得的靶基因集合,通过联川生物云平台进行GO功能注释及KEGG通路富集分析,筛选出参与调控机体炎症反应或免疫调控的靶基因,使用RNAhybrid(https://bibiserv.cebitec.uni-bielefeld.de/rnahybrid)进一步对靶基因进行筛选。确定核心靶基因及其相关信号通路后,采用qRT-PCR对靶基因及相关信号通路关键基因的mRNA相对表达量进行检测。

1.7 测定指标及方法

1.7.1 CCK-8法检测细胞活力

bMECs按照试验设计处理后,每孔加入10 μL CCK-8溶液,在37 ℃条件下孵育1 h,使用酶标仪检测450 nm处的吸光度(OD)值,以含细胞、培养基、CCK-8但不含LPS的孔为对照孔,含培养基、CCK-8,但不含细胞和LPS的孔为空白对照孔,计算细胞活力。细胞活力计算公式如下:

细胞活力(%)=[(试验孔OD值-对照孔OD值)/(对照孔OD值-空白对照孔OD值)]×100。

1.7.2 qRT-PCR法检测目的基因mRNA相对表达量

bMECs按照试验设计处理后,收集细胞提取总RNA,按照反转录试剂盒说明书将其反转录为cDNA。将所得的cDNA样品4倍稀释后,采用实时荧光定量检测试剂盒检测目的基因的mRNA相对表达量。根据Primer 5.0软件设计特异性引物,目的基因包括mtr-miR159a、炎症因子基因(IL-8、IL-6、IL-1β)、增殖相关基因[细胞周期蛋白D1(CCND1)、细胞周期蛋白D2(CCND2)、细胞周期蛋白依赖性激酶2(CDK2)和增殖细胞核抗原(PCNA)]、凋亡相关基因[半胱氨酸天冬氨酸蛋白酶3(Caspase3)、半胱氨酸天冬氨酸蛋白酶9(Caspase9)、B淋巴细胞瘤-2蛋白(BCL2)、B淋巴细胞瘤-2相关X蛋白(BAX)]、趋化因子信号通路相关基因[趋化因子受体5(CCR5)、CXC趋化因子配体8(CXCL8)、CC趋化因子配体2(CCL2)和核因子-κB抑制蛋白ζ(NFKBIZ),内参基因为甘油醛-3-磷酸脱氢酶(GAPDH),引物序列见表2。引物由生工生物工程(上海)股份有限公司合成。将合成引物经超纯水溶解后,于-20 ℃条件下保存备用。qRT-PCR的反应体系:2×M5 HiPer SYBR Premix EsTaq (with Tli RNaseH) 10 μL,上、下游引物各0.4 μL,cDNA 2.0 μL,灭菌去离子水7.2 μL。反应程序:95 ℃预变性30 s;随后进入循环阶段,95 ℃变性5 s、60 ℃退火延伸30 s,共计39个循环。以GAPDH为内参基因进行标准化,采用2-ΔΔCt相对定量法计算各目的基因的mRNA相对表达量。
表2 实时荧光定量PCR引物序列

Table 2 qRT-PCR primer sequences

基因名称
Gene names
引物序列
Primer sequences (5'—3')
苜蓿源miR159a
mtr-miR159a
F:CGGCTTTGGATTGAAGG
R:TGCAGGGTCCGAGGTATT
白细胞介素-6
IL-6
F:GCCCTTCACTCATCGCTGTCCTCTC
R:AAGTAGTCTGCCTGGGGGTGGTG
白细胞介素-8
IL-8
F:TTCTCCTAGTAAAAGATGGCCAAATG
R:GACAACCCTACACCACAGACCCC
白细胞介素-1β
IL-1β
F:CTCCGACGACGAGTTTCTGTGTGACG
R:GAGAGGAGGGTGGAGAGGCCTTCAG
细胞周期蛋白依赖性激酶2
CDK2
F:GATGGACGGAGCTTGTTATCG
R:ATCACACTCACACTGGAGAAGA
细胞周期蛋白D1
CCND1
F:GCACGACTTCATCGAGCACT
R:GAACTTCACGTCTGTGGCA
细胞周期蛋白D2
CCND2
F:CACCGATGTGGATTGCCTCA
R:TCCAGCTCATCCTCCGACTT
增殖细胞核抗原
PCNA
F:TCCAGAACAAGAGTATAGC
R:TACAACAGCATCTCCAAT
半胱氨酸天冬氨酸蛋白酶3
Caspase3
F:AAGATTTAGTGCCGATGC
R:GACCACCAAGTTCTAGGATA
半胱氨酸天冬氨酸蛋白酶9
Caspase9
F:CCTGCCTTACCATTCACC
R:GCATTCTGCTCCTCCTCC
B淋巴细胞瘤-2蛋白
BCL2
F:GATGACCGAGTACCTGAACCG
R:GACAGCCAGGAGAAATCAAACA
B淋巴细胞瘤-2相关X蛋白
BAX
F:GCAAACTGGTGCTCAAGG
R:GCACTCCAGCCACAAAGA
趋化因子受体5
CCR5
F:GGGCTCCCTACAACATCGTC
R:TTGGTCCAGCCTGTTAGAGC
CXC趋化因子配体8
CXCL8
F:CCACACCTTTCCACCCCAAA
R:GGGTTTAGGCAGACCTCGTT
CC趋化因子配体2
CCL2
F:CACCAGCAGCAAGTGTCCTA
R:CTGCTTGGGGTCTGCACATA
核因子κB抑制蛋白ζ
NFKBIZ
F:ACGCCGGTTAAAAAGTCGGG
R:TACTAGCTCTGACGGGCTCA
甘油醛-3-磷酸脱氢酶
GAPDH
F:GGCATCGTGGAGGGACTTATG
R:GCCAGTGAGCTTCCCGTTGAG

1.7.3 ELISA法检测炎症因子含量

bMECs按照试验设计处理后,收集细胞上清液,采用ELISA试剂盒检测bMECs分泌的IL-6、IL-8、IL-1β和TNF-α含量。操作按试剂盒说明进行,简述如下:设空白孔、标准孔和待测样品孔,标准孔加入50 μL梯度稀释的标准品,待测孔加入50 μL上清液;随后每孔加入100 μL HRP标记的检测抗体,封板后37 ℃孵育1 h;弃去孔内液体,用350 μL洗涤液浸泡洗涤1 min,重复5次,拍干;每孔依次加入50 μL显色剂A液和B液,混匀后37 ℃避光孵育15 min,加入50 μL终止液;于450 nm波长处测定OD值,以标准品OD值为横坐标、浓度为纵坐标绘制标准曲线,计算上清液中各炎症因子的含量。

1.7.4 EdU法检测bMECs的增殖情况

将bMECs接种于6孔细胞培养板中,待细胞融合度达到60%~70%,分别转染mtr-miR159a mimic及相应的阴性对照NC mimic;转染24 h后加入终浓度为50 ng/μL的LPS诱导炎症反应,诱导24 h后参照EdU-488细胞增殖检测试剂盒说明书检测bMECs增殖情况。EdU孵育结束后在荧光显微镜下观察并采集图像,绿色荧光标记增殖细胞的细胞核,蓝色荧光标记所有细胞的细胞核,计算阳性细胞百分比(100×绿色荧光标记的细胞核数/蓝色荧光标记的细胞核数),并以LPS组为基准进行归一化,数据以相对值表示。

1.8 数据处理与分析

所有用于进行统计分析的数据,均来源于3次独立的重复试验。试验数据采用SPSS 27.0软件进行单因素方差分析,组间采用Duncan氏法进行多重比较,使用GraphPad Prism 10.1.2软件作图。P>0.05为差异不显著,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 LPS诱导的bMECs炎症模型的建立

2.1.1 LPS处理时间对bMECs活力的影响
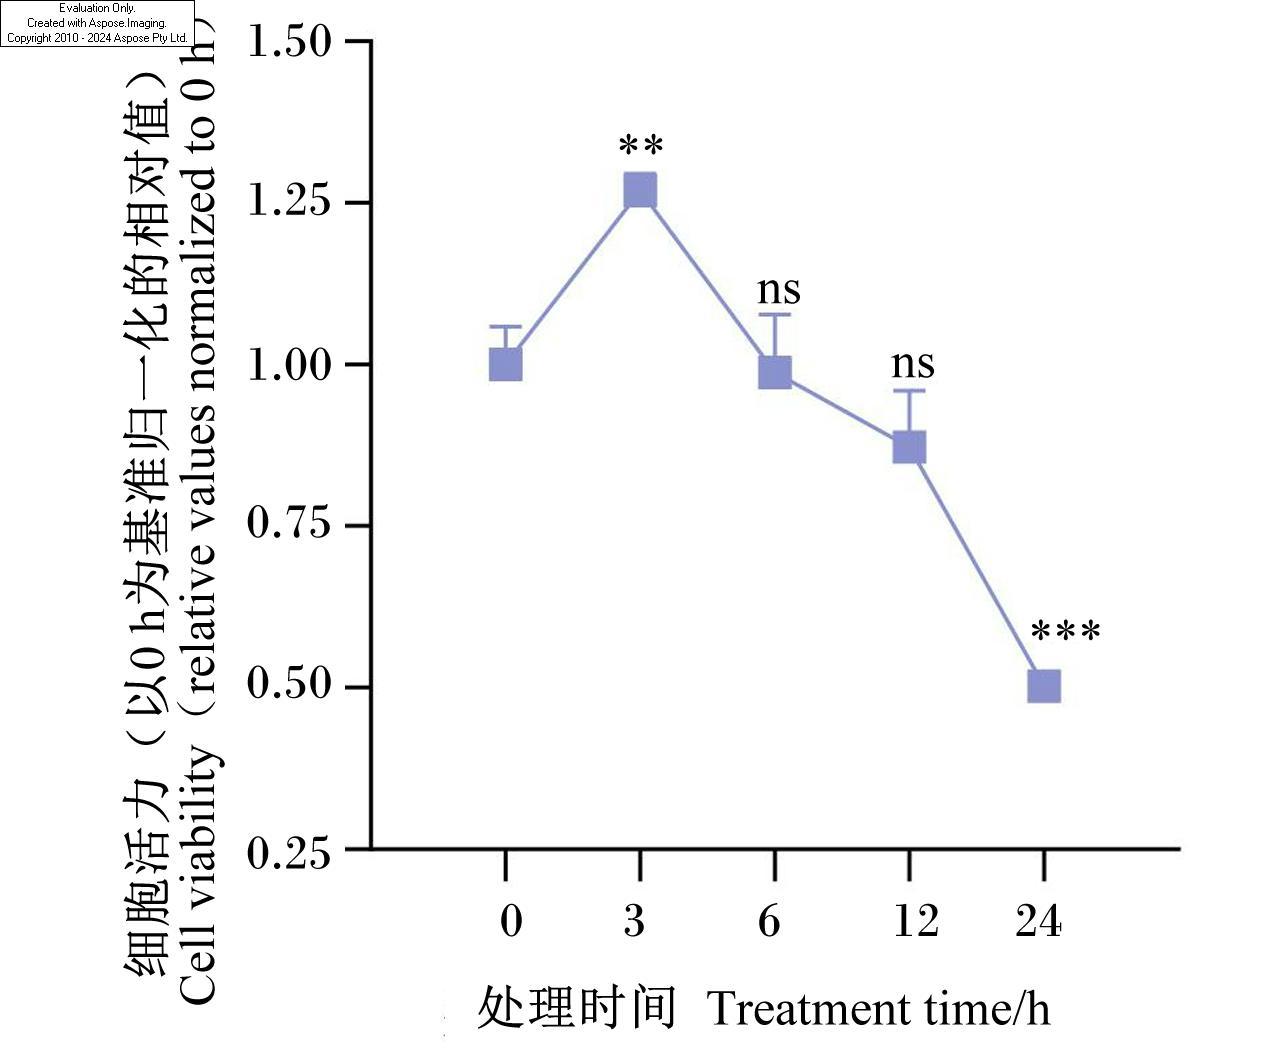
图1所示,采用50 ng/μL LPS处理bMECs后,细胞活力随处理时间的延长呈现先升高后降低的趋势。与0 h(处理前)相比,LPS处理3 h时细胞活力极显著升高(P<0.01);处理6和12 h时细胞活力有所降低,但差异不显著(P>0.05);处理24 h时细胞活力极显著降低(P<0.001)。上述结果说明,50 ng/μL的LPS处理24 h对bMECs活力的抑制效果最强。
图1 LPS处理时间对bMECs活力的影响

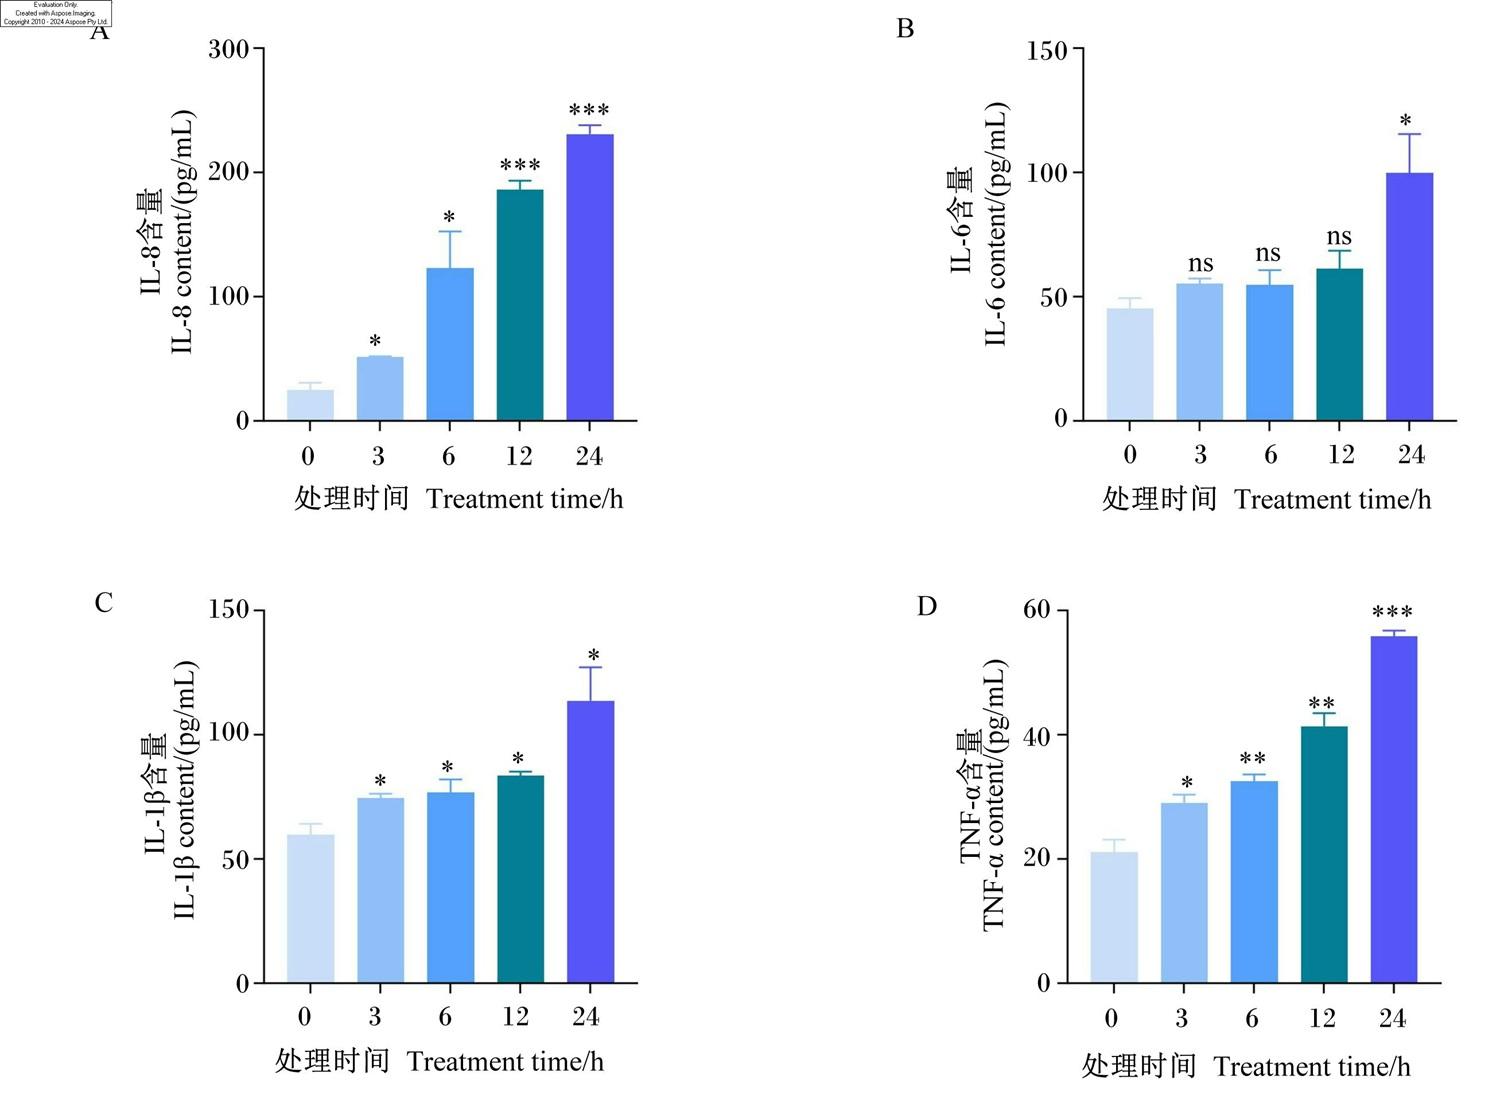
与0 h(处理前)相比,ns表示P>0.05(差异不显著),*表示P<0.05(差异显著),**表示P<0.01(差异极显著),***表示P<0.001(差异极显著)。图2图3同。

Fig.1 Effects of LPS treatment time on bMECs viability

Compared with the 0 h (pre-treatment), ns indicates P>0.05 (no significant difference), * indicates P<0.05 (significant difference), ** indicates P<0.01 (extremely significant difference), and *** indicates P<0.001 (extremely significant difference). The same as Fig.2 and Fig.3.

2.1.2 LPS处理时间对bMECs中炎症因子基因表达及炎症因子分泌的影响
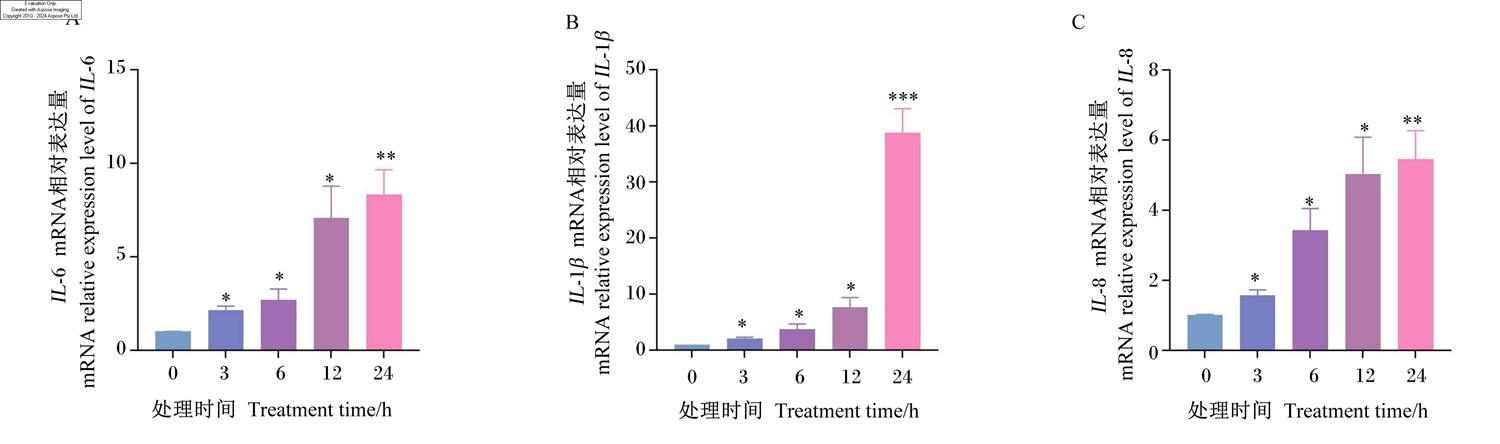
对细胞中炎症因子基因表达的qRT-PCR检测结果(图2)显示,与0 h相比,LPS处理3、6、12和24 h时IL-6、IL-1βIL-8的mRNA相对表达量均显著或极显著升高(P<0.05、P<0.01或P<0.001),且均在LPS处理24 h时达到峰值。对上清液中炎症因子含量的ELISA检测结果(图3)显示,与0 h相比,LPS处理3、6、12、24 h时IL-8、IL-1β和TNF-α含量均显著或极显著升高(P<0.05、P<0.01或P<0.001),而IL-6含量仅在LPS处理24 h时显著升高(P<0.05),且上述4种炎症因子的含量均在LPS处理24 h时达到峰值。上述结果说明,50 ng/μL的LPS处理bMECs 24 h可成功构建bMECs炎症模型,因此后续试验选定LPS处理时间为24 h。
图2 LPS处理时间对bMECs中炎症因子基因表达的影响

Fig.2 Effects of LPS treatment time on expression of inflammatory cytokine genes in bMECs

图3 LPS处理时间对bMECs中炎症因子分泌的影响

Fig.3 Effects of LPS treatment time on secretion of inflammatory cytokines in bMECs

2.2 mtr-miR159a转染效率

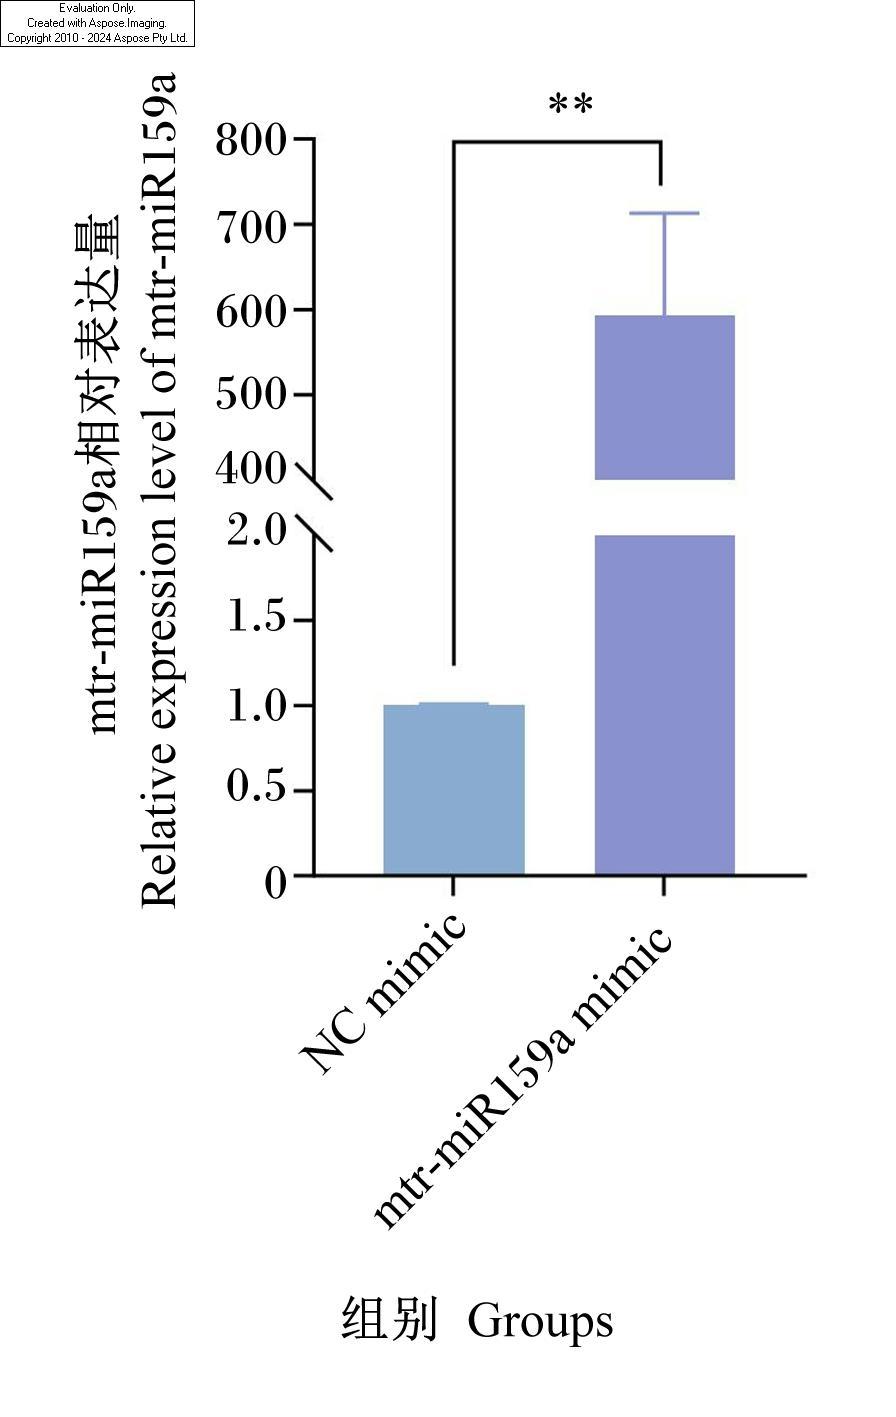
采用qRT-PCR检测mtr-miR159a的转染效率,以NC mimic作为阴性对照。如图4所示,与NC mimic组相比,mtr-miR159a mimic组mtr-miR159a的相对表达量极显著升高(P<0.01)。上述结果表明,瞬时转染可成功实现mtr-miR159a在bMECs中的过表达,满足后续试验要求。
图4 mtr-miR159a的相对表达量

ns表示P>0.05(差异不显著),*表示P<0.05(差异显著),**表示P<0.01(差异极显著),***表示P<0.001(差异极显著)。图5图6图7图8图10同。

Fig.4 Relative expression level of mtr-miR159a

ns indicates P>0.05 (no significant difference), * indicates P<0.05 (significant difference), ** indicates P<0.01 (extremely significant difference), and *** indicates P<0.001 (extremely significant difference). The same as Fig.5, Fig.6, Fig.7, Fig.8 and Fig.10.

2.3 mtr-miR159a对LPS诱导的bMECs炎症反应的影响

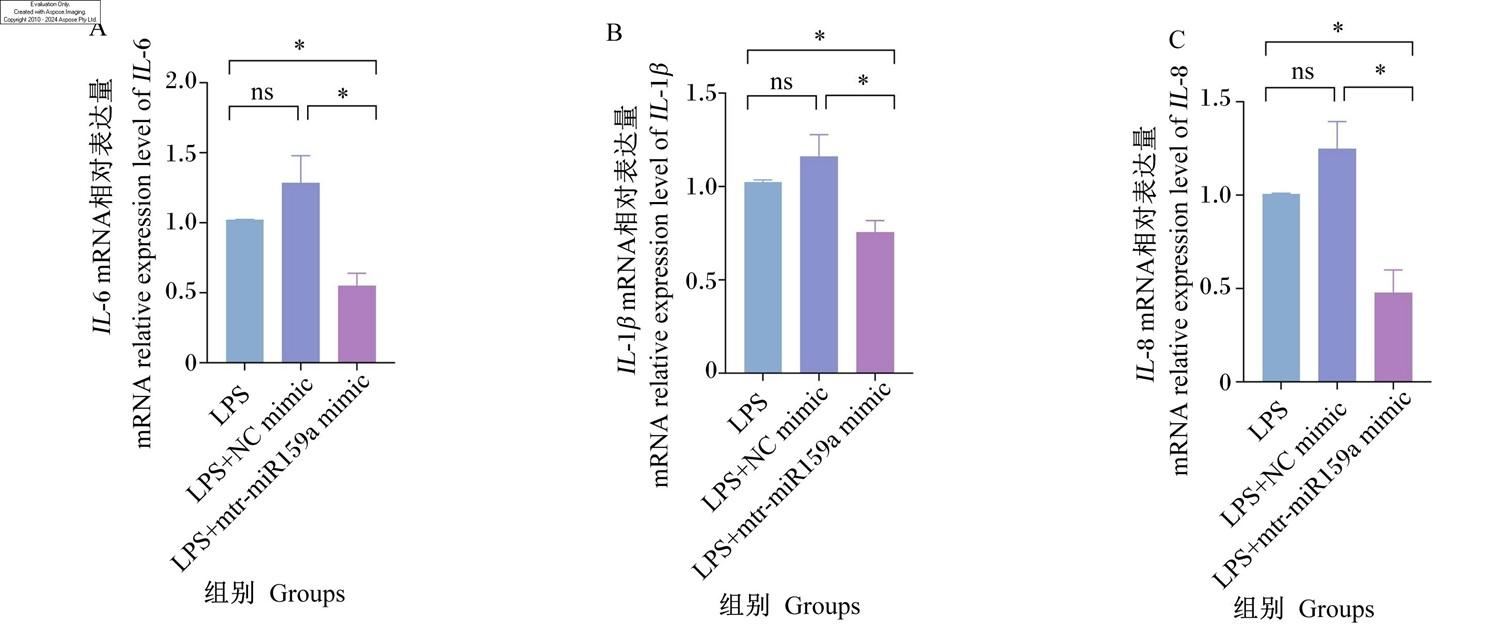
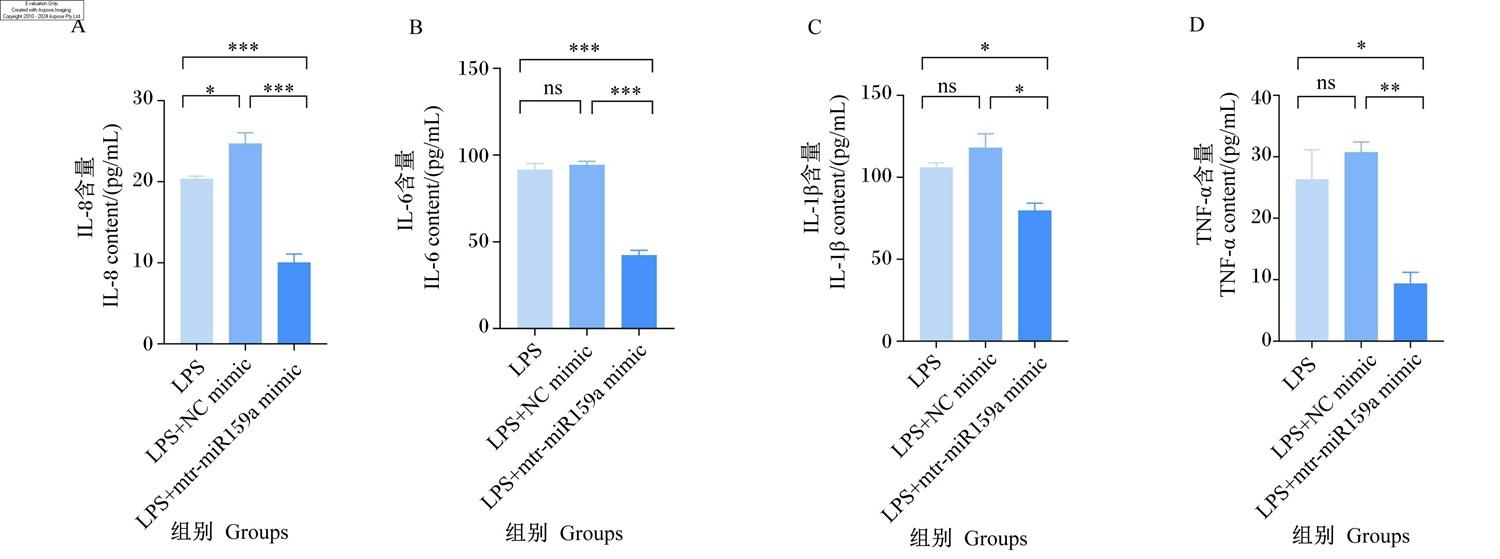
在bMECs中过表达mtr-miR159a mimic后,采用50 ng/μL LPS处理bMECs 24 h诱导炎症模型,以评估mtr-miR159a对LPS诱导的bMECs炎症反应的影响。对细胞中炎症因子基因表达的qRT-PCR检测结果(图5)所示,与LPS组相比,LPS+mtr-miR159a mimic组IL-6、IL-1βIL-8的mRNA相对表达量显著降低(P<0.05);LPS+NC mimic组IL-6、IL-1βIL-8的mRNA相对表达量有一定程度升高,但差异未达显著水平(P>0.05)。与LPS+NC mimic组相比,LPS+mtr-miR159a mimic组IL-6、IL-1βIL-8的mRNA相对表达量显著降低(P<0.05)。对上清液中炎症因子含量的ELISA检测结果(图6)显示,与LPS组相比,LPS+mtr-miR159a mimic组IL-1β和TNF-α含量显著降低(P<0.05),IL-6、IL-8含量极显著降低(P<0.001);LPS+NC mimic组IL-8含量显著升高(P<0.05),IL-6、IL-1β和TNF-α含量有一定程度升高,但差异未达显著水平(P>0.05)。与LPS+NC mimic组相比,LPS+mtr-miR159a mimic组IL-8、IL-6、IL-1β和TNF-α含量显著或极显著降低(P<0.05、P<0.01或P<0.001)。由上述结果可知,mtr-miR159a能够有效抑制LPS诱导的bMECs中炎症因子基因IL-6、IL-1βIL-8的表达和炎症因子IL-8、IL-6、IL-1β和TNF-α的分泌,提示其在炎症反应中具有重要的调控作用。
图5 mtr-miR159a对LPS诱导的bMECs中炎症因子基因表达的影响

Fig.5 Effects of mtr-miR159a on expression of inflammatory cytokine genes in LPS-induced bMECs

图6 mtr-miR159a对LPS诱导的bMECs中炎症因子分泌的影响

Fig.6 Effects of mtr-miR159a on secretion of inflammatory cytokines in LPS-induced bMECs

2.4 mtr-miR159a对LPS诱导的bMECs凋亡的影响

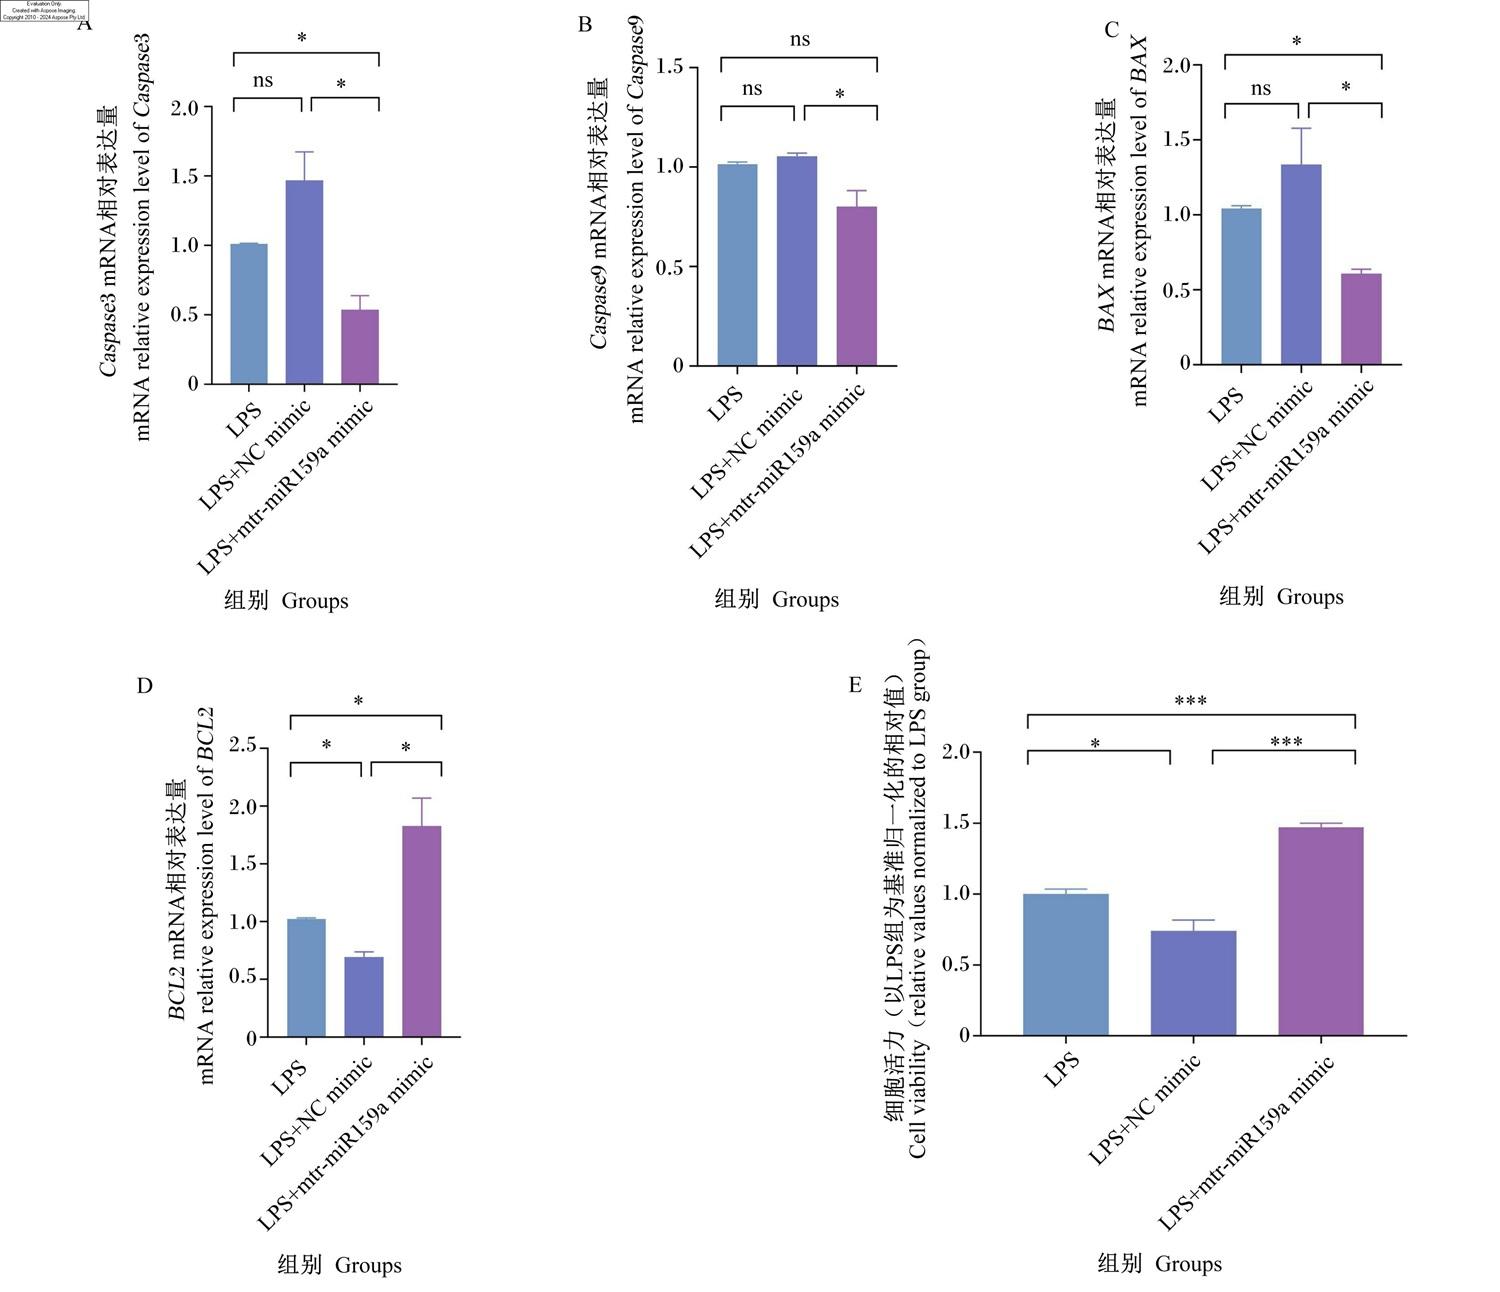
为探究mtr-miR159a对LPS诱导的bMECs凋亡的影响,在bMECs中过表达mtr-miR159a后进行LPS诱导,24 h后采用qRT-PCR检测细胞中凋亡相关基因Caspase3、Caspase9、BAXBCL2的mRNA相对表达量,并采用CCK-8法检测细胞活力。qRT-PCR检测结果(图7-A~D)显示,与LPS组相比,LPS+mtr-miR159a mimic组Caspase3和BAX的mRNA相对表达量显著降低(P<0.05),BCL2的mRNA相对表达量显著升高(P<0.05),而Caspase9的mRNA相对表达量无显著变化(P>0.05);LPS+NC mimic组BCL2的mRNA相对表达量显著降低(P<0.05),Caspase3、Caspase9和BAX的mRNA相对表达量有一定程度升高,但差异未达显著水平(P>0.05)。与LPS+NC mimic组相比,LPS+mtr-miR159a mimic组Caspase3、Caspase9和BAX的mRNA相对表达量显著降低(P<0.05),BCL2的mRNA相对表达量显著升高(P<0.05)。细胞活力检测结果(图7-E)显示,与LPS组相比,LPS+mtr-miR159a mimic组极显著升高(P<0.001),LPS+NC mimic组显著降低(P<0.05);与LPS+NC mimic组相比,LPS+mtr-miR159a mimic组极显著升高(P<0.001)。上述结果表明,mtr-miR159a可有效抑制LPS诱导的bMECs凋亡,恢复细胞活力。
图7 mtr-miR159a对LPS诱导的bMECs凋亡的影响

Fig.7 Effects of mtr-miR159a on apoptosis of LPS-induced bMECs

2.5 mtr-miR159a对LPS诱导的bMECs增殖能力的影响

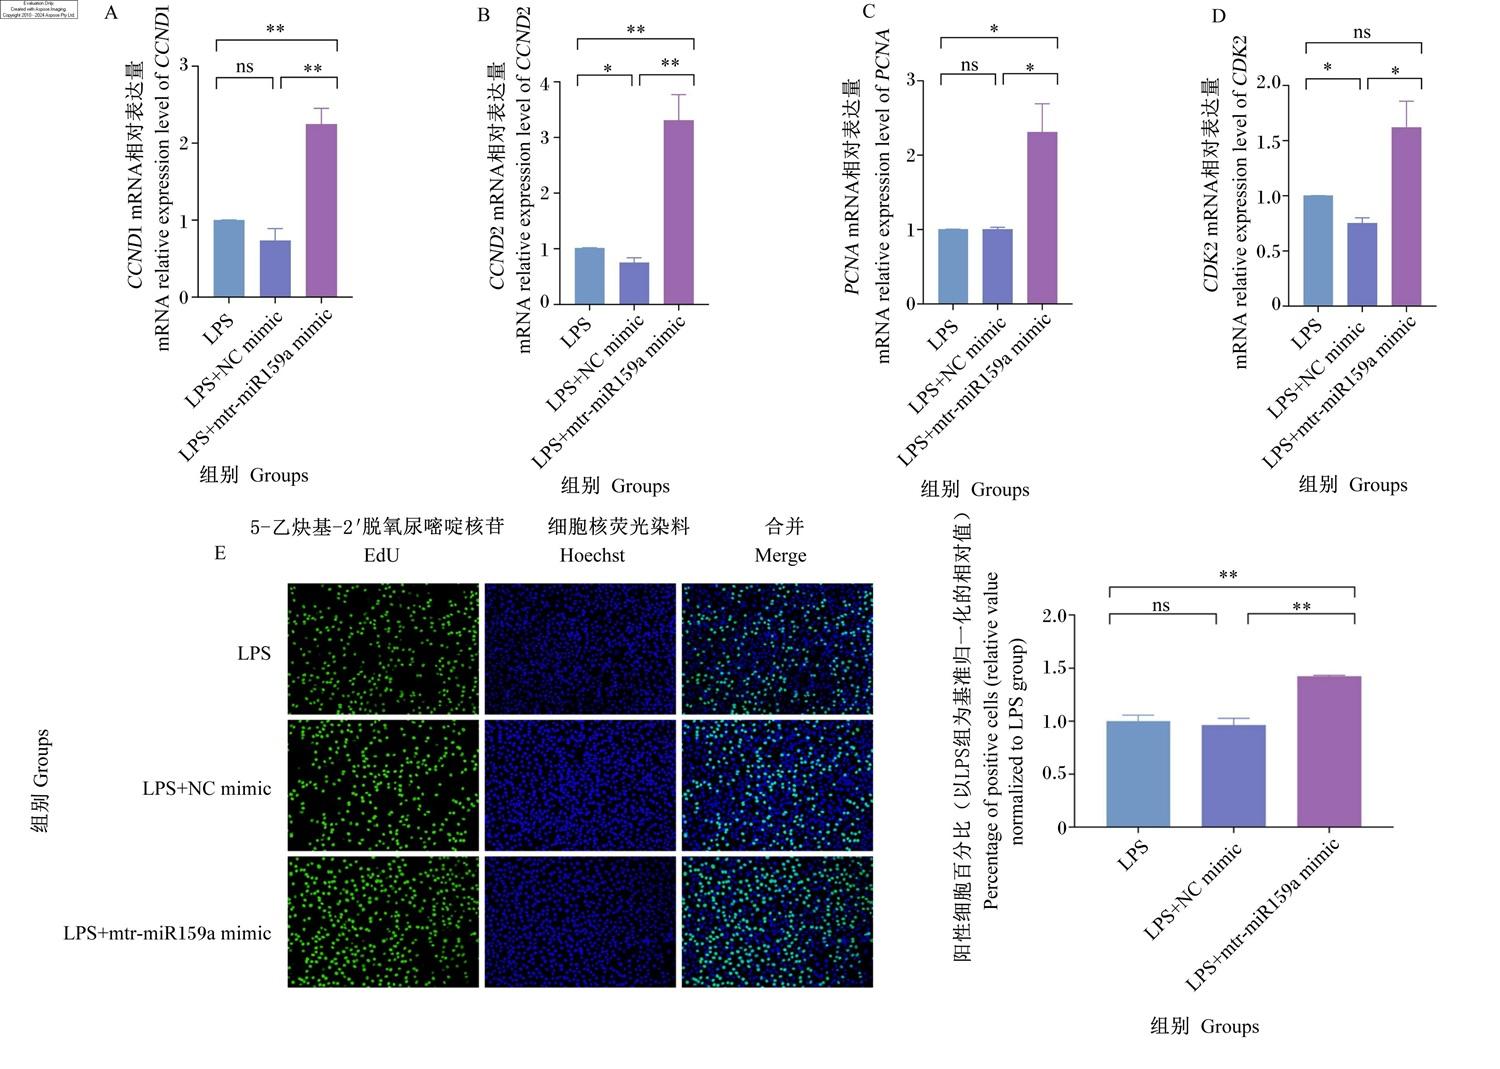
为探究mtr-miR159a对LPS诱导的bMECs增殖能力的影响,在bMECs中过表达mtr-miR159a后进行LPS诱导,24 h后采用qRT-PCR检测细胞中增殖相关基因CCND1、CCND2、PCNACDK2的mRNA相对表达量,并采用EdU法检测细胞的增殖情况。qRT-PCR检测结果(图8-A~D)显示,与LPS组相比,LPS+mtr-miR159a mimic组CCND1、CCND2的mRNA相对表达量极显著升高(P<0.01),PCNA的mRNA相对表达量显著升高(P<0.05),CDK2的mRNA相对表达量无显著变化(P>0.05);LPS+NC mimic组CCND2、CDK2的mRNA相对表达量显著降低(P<0.05),CCND1的mRNA相对表达量有一定程度降低,但差异未达显著水平(P>0.05)。与LPS+NC mimic组相比,LPS+mtr-miR159a mimic组CCND1、CCND2的mRNA相对表达量极显著升高(P<0.01),PCNACDK2的mRNA相对表达量显著升高(P<0.05)。EdU染色结果(图8-E)显示,与LPS组相比,LPS+mtr-miR159a mimic组阳性细胞百分比极显著升高(P<0.01);LPS+NC mimic组阳性细胞百分比无显著变化(P>0.05);与LPS+NC mimic组相比,LPS+mtr-miR159a mimic组阳性细胞百分比极显著升高(P<0.01)。上述结果表明,mtr-miR159a对LPS诱导的bMECs的增殖能力有明显的恢复作用。
图8 mtr-miR159a对LPS诱导的bMECs增殖能力的影响

Fig.8 Effects of mtr-miR159a on proliferation ability of LPS-induced bMECs

2.6 mtr-miR159a靶基因预测及趋化因子信号通路关键基因验证

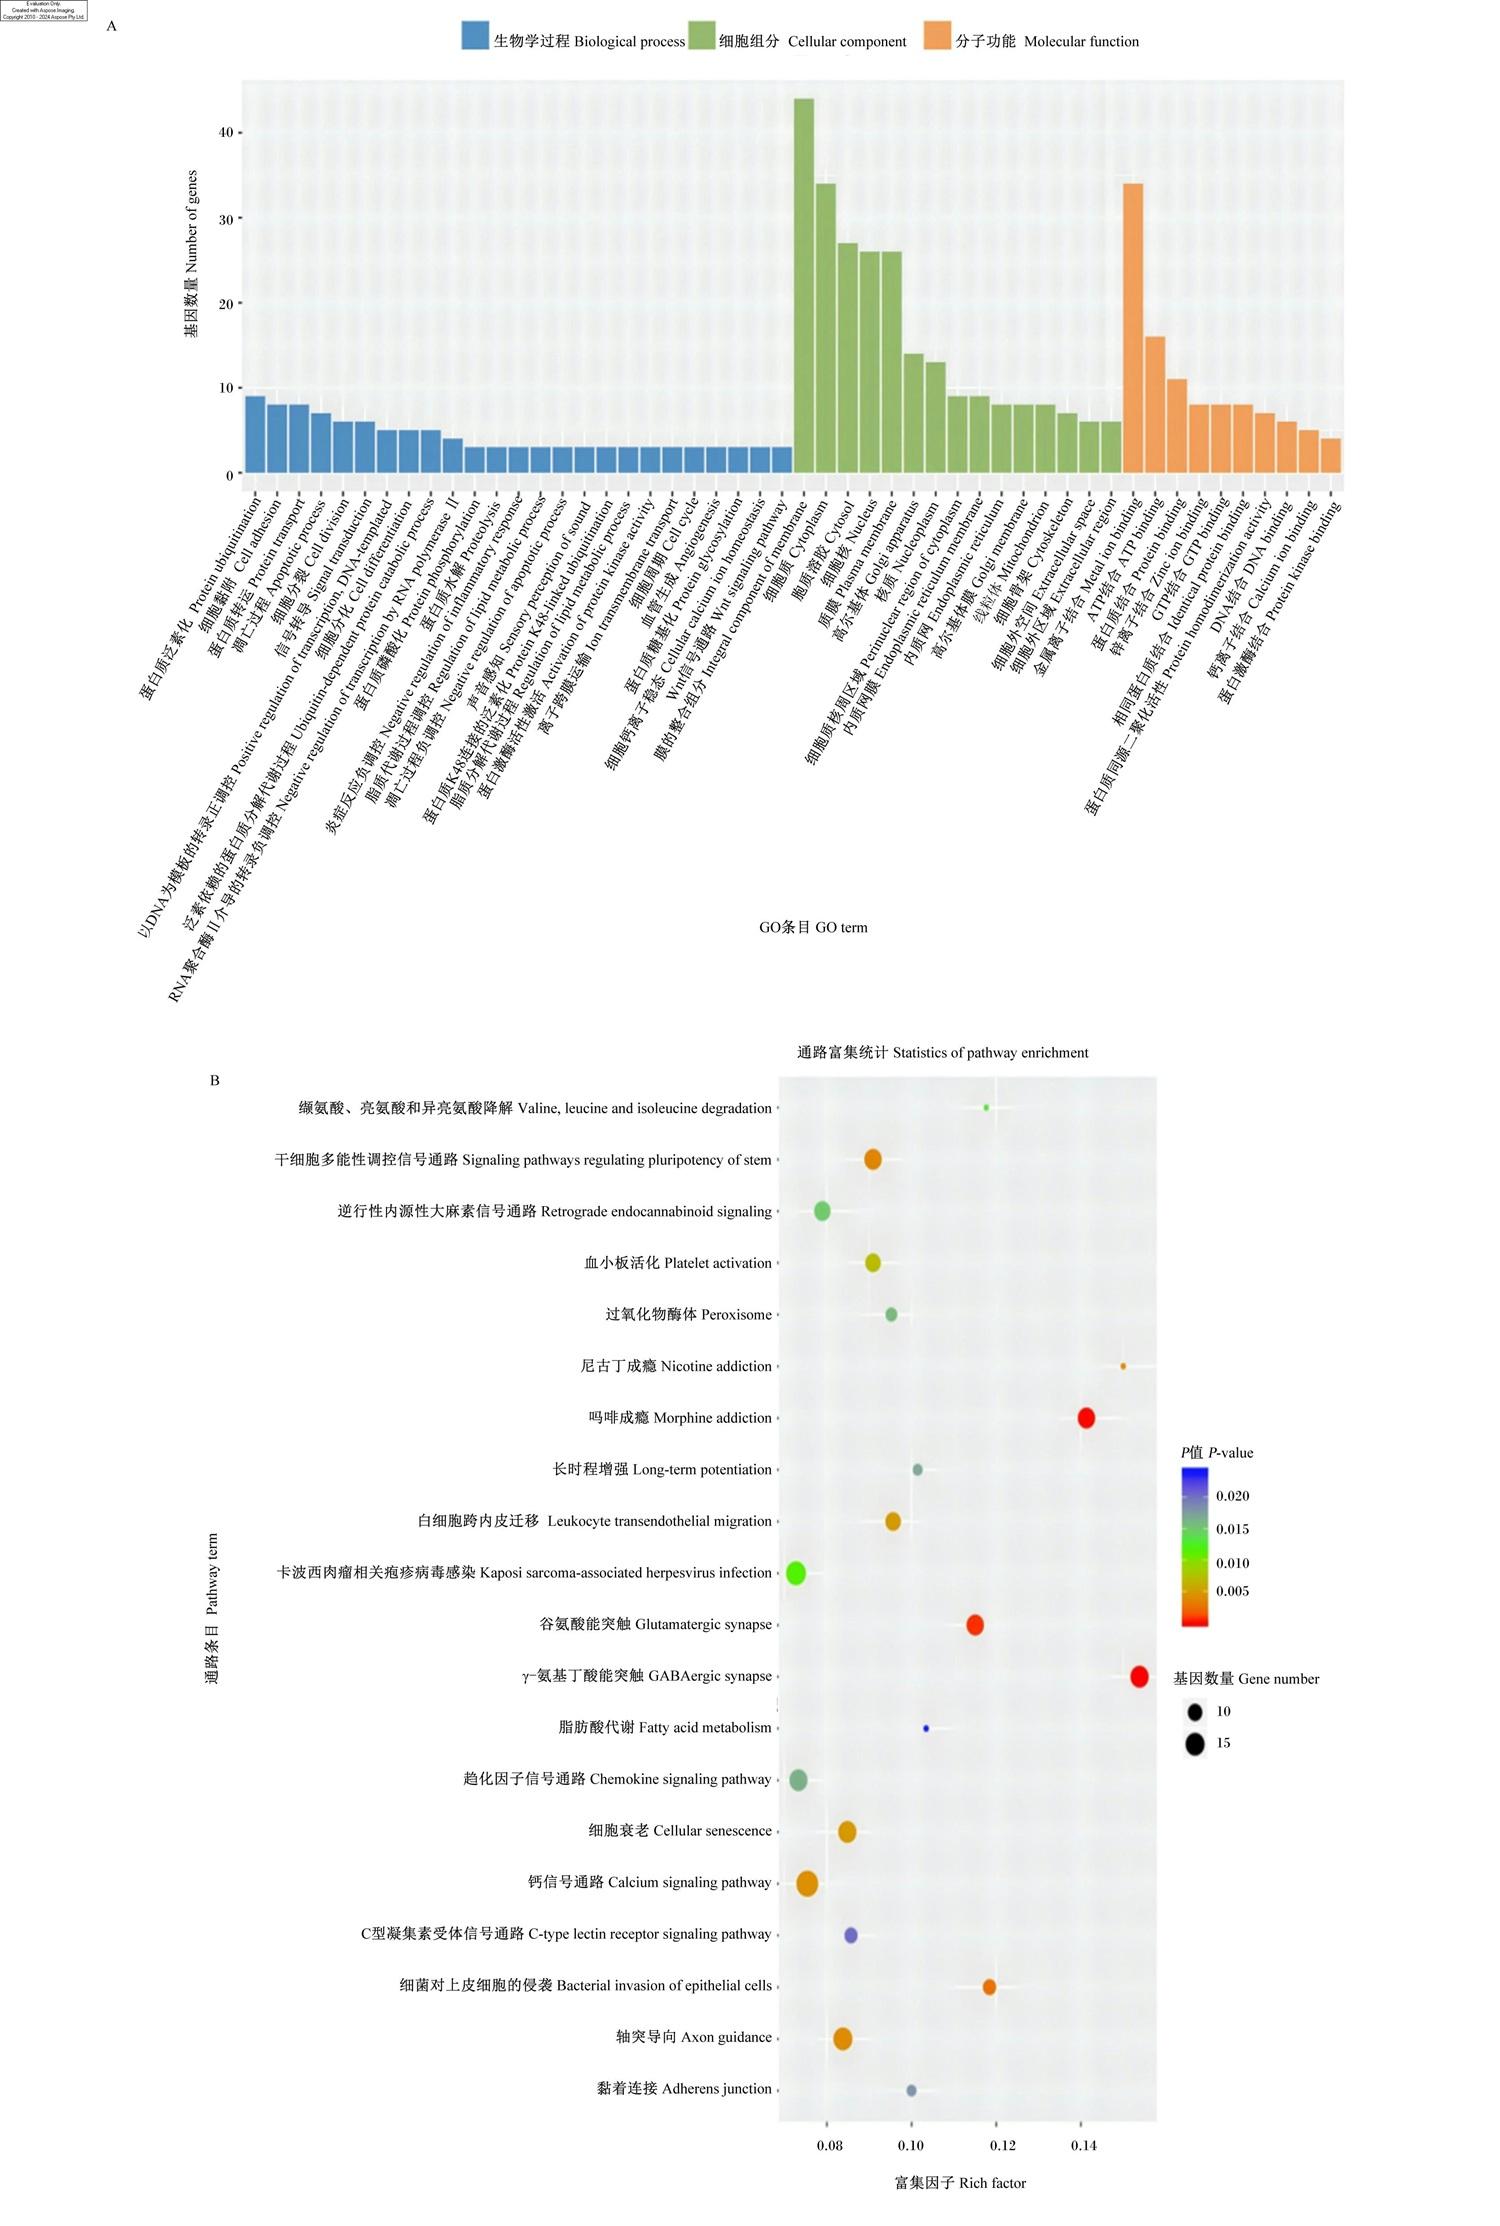
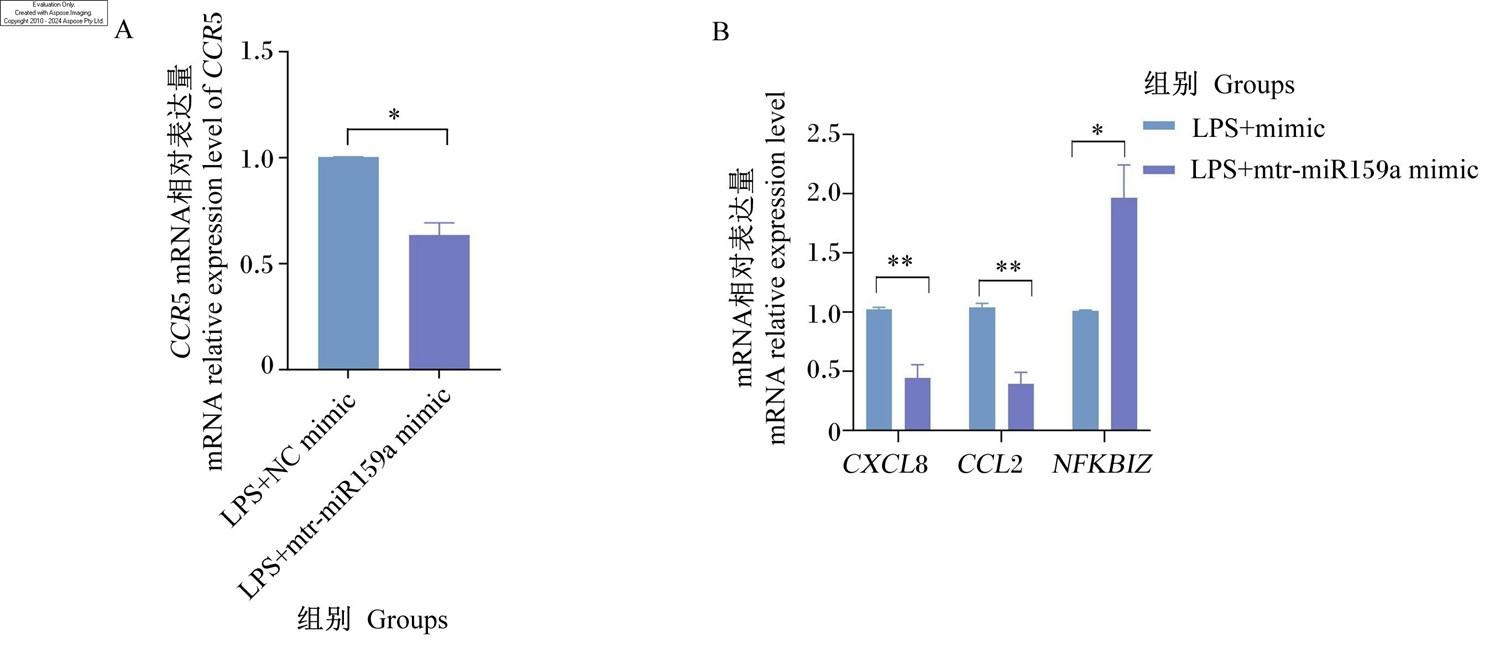
预测靶基因的GO功能注释结果(图9-A)显示,在生物过程(biological process,BP)层面,靶基因主要参与蛋白质泛素化(protein ubiquitination)、细胞黏附(cell adhesion)及蛋白质转运(protein transport),分别有9、8和8个靶基因参与上述过程;在细胞组分(cellular component,CC)层面,靶基因主要定位于膜的固有组分(integral component of membrane)、细胞质(cytoplasm)和胞质(cytosol),分别有44、34和27个靶基因定位于上述组分;而在分子功能(MF)层面,靶基因主要参与的功能为金属离子结合(metal ion binding)、ATP结合(ATP binding)和蛋白质结合(protein binding),分别有16、34和11个靶基因具备上述分子功能特征。预测靶基因的KEGG通路富集分析结果(图9-B)显示,靶基因主要参与趋化因子信号通路(chemokine signaling pathway)、白细胞跨内皮迁移(leukocyte transendothelial migration)、C型凝集素受体信号通路(C-type lectin receptor signaling pathway)和细菌侵袭上皮细胞(bacterial invasion of epithelial cells)等与炎症反应或机体免疫调控相关的信号通路。将趋化因子信号通路作为研究对象,筛选出mtr-miR159a在该通路中的靶基因,并选取自由能绝对值较大的CCR5为潜在靶基因。qRT-PCR检测结果(图10)显示,与LPS+NC mimic组相比,LPS+mtr-miR159a mimic组中CCR5的表达被显著抑制(P<0.05),CXCL8和CCL2的mRNA相对表达量均极显著降低(P<0.01),而NFKBIZ的mRNA相对表达量则显著升高(P<0.05)。上述结果提示,CCR5可能是mtr-miR159a的靶基因,且mtr-miR159a对趋化因子信号通路中的关键基因具有调控作用。
图9 mtr-miR159a靶基因的GO功能注释和KEGG通路富集分析

Fig.9 GO functional annotation and KEGG pathway enrichment analysis of target genes of mtr-miR159a

图10 趋化因子信号通路中mtr-miR159a靶基因的验证

Fig.10 Validation of mtr-miR159a target genes in chemokine signaling pathway

3 讨论

LPS是一种由脂质和多糖构成的复合物,作为革兰氏阴性菌外膜的主要组分和典型的PAMP,其可被bMECs膜表面的TLR4特异性识别,进而激活下游炎症信号通路,诱导bMECs中促炎细胞因子的表达[24]。为探究LPS处理时间对bMECs的影响,本试验采用CCK-8法检测了不同处理时间时的bMECs活力,结果显示,当50 ng/μL LPS对bMECs处理3 h时,细胞活力极显著升高,随后细胞活力逐渐降低,在24 h时降到最低。本研究中LPS处理时间与bMECs活力未呈现线性负相关关系,其原因可能是bMECs受到LPS诱导的损伤与感染刺激后,通过细胞因子及其他局部、系统性信号扰动,激活自身免疫调节与抗炎功能,进而启动炎症消退进程[25]。樊嘉琦等[26]研究发现,使用10 mg/L的LPS处理bMECs后,细胞活力初期几乎无变化,后期逐渐降低。Li等[27]研究表明,采用10 ng/mL的LPS处理bMECs后,细胞活力呈现先下降、后恢复、再下降的阶段性变化。
IL-1β、IL-6、IL-8及TNF-α作为经典促炎细胞因子,是检测bMECs炎症发生的常用标志性因子,这些炎症因子主要通过调控NF-κB、Janus激酶(JAK)-信号转导及转录激活因子(STAT)等信号通路参与机体免疫应答与炎症反应[28-31]。Li等[23]研究表明,使用50 ng/μL LPS诱导MAC-T细胞6 h时,miR-199a-3p相对表达量达到峰值,同时上清液中炎症因子IL-1β、IL-6和TNF-α的含量升高。冯芬等[32]研究发现,使用50 ng/μL LPS诱导bMECs后,lncRNA TCONS_00143126的表达量显著升高,且主要分布于细胞核中。参考上述研究,本研究采用50 ng/μL的LPS诱导bMECs炎症模型。通过筛选LPS诱导bMECs炎症模型的处理时间发现,50 ng/μL的LPS处理24 h可显著或极显著提高细胞中IL-6、IL-1βIL-8的mRNA相对表达量,同时可显著或极显著升高上清液中IL-6、IL-1β、IL-8和TNF-α含量,说明50 ng/μL LPS处理24 h成功诱导了bMECs的炎症反应,所构建的炎症模型可满足后续试验需求。
miRNA在奶牛乳腺发育和乳腺炎的发生过程中发挥着重要调控作用[33-34]。Eken等[35]研究发现,过表达miR-29b可通过靶向抑制辐射损伤血管组织中的特征性标志基因正五聚蛋白3(PTX3)与二肽基肽酶4(DPP4)的表达,进而缓解辐射诱导的血管炎症反应。Sun等[36]研究表明,miR-451通过靶向TLR4抑制LPS诱导的小胶质细胞炎症。随着对miRNA研究的不断深入,众多学者发现植物来源的miRNA可突破物种屏障,对动物机体的生理代谢、免疫应答及细胞信号传导等生理过程发挥跨界调控作用。例如,Zhang等[37]揭示了植物来源的miR168a可通过靶向抑制小鼠肝脏中低密度脂蛋白受体衔接蛋白1(LDLRAP1)的表达发挥作用;Chen等[38]深入探究了哺乳动物对植物来源的miRNA的吸收机制,得出植物来源的miRNA在哺乳动物体内的主要吸收部位是胃;Li等[39]研究发现,过表达mtr-miR156a可下调蛋白磷酸酶2调节亚基B’δ(PPP2R5D)与磷脂酰肌醇3-激酶调节亚基2(PIK3R2)表达,调控磷脂酰肌醇3-激酶(PI3K)-蛋白激酶B(AKT)-哺乳动物雷帕霉素靶蛋白(mTOR)信号通路,并影响bMECs中酪蛋白含量;Yan等[40]研究表明,生姜外泌体衍生的osa-miR164d可靶向转化生长因子β激活激酶1结合蛋白1(TAB1),通过下调NF-κB的表达来调节巨噬细胞极化,从而抑制肠道炎症反应。上述这些研究结果证明了植物外源性miRNA可进入哺乳动物体内并稳定存在,揭示了其在哺乳动物体内发挥调控作用的具体机制。但目前尚未发现mtr-miR159a可在奶牛乳腺炎中发挥调控作用。
为探究mtr-miR159a对奶牛乳腺炎的调控作用,本研究在bMECs中转染mtr-miR159a mimic进行mtr-miR159a过表达,随后采用LPS诱导bMECs炎症模型,进而评估mtr-miR159a过表达对LPS诱导的bMECs炎症反应、凋亡及增殖的影响。结果显示,过表达mtr-miR159a可显著抑制LPS诱导的bMECs中促炎细胞因子基因、凋亡相关基因的表达,促进增殖相关基因的表达。上述结果提示,mtr-miR159a可能通过抑制炎症反应和细胞凋亡、促进细胞增殖,从而缓解LPS诱导的bMECs炎症损伤,其在奶牛乳腺炎防治中具有一定的潜在应用价值。此外,本研究发现,转染NC mimic可能会导致bMECs炎症反应程度加深,其原因可能与转染试剂LipofectamineTM 3000的毒性有关。LipofectamineTM 3000属于阳离子脂质体转染试剂,它能够利用阳离子脂质体与核酸分子之间的电荷相互作用,将DNA或RNA等核酸分子有效地包裹并递送到细胞内。阳离子脂质体本身可诱导TNF-α快速产生,并引起急性细胞浸润;与质粒复合后,还可进一步增强细胞因子表达和细胞浸润水平[41]。相关研究表明,给健康小鼠腹腔注射与质粒DNA复合的阳离子脂质体,可诱导全身性炎症反应[42]
通过对预测靶基因进行GO功能注释和KEGG通路富集分析发现,候选靶基因参与的生物学过程主要涉及蛋白质泛素化、细胞黏附及蛋白质转运等,并富集于趋化因子信号通路、白细胞跨内皮迁移和C型凝集素受体信号通路等通路中。趋化因子是一类通过调节细胞迁移和聚集发挥关键作用的细胞因子,主要介导白细胞在炎症部位的趋化作用[43]。Rossi等[44]研究发现,炎症趋化因子CXC趋化因子配体12(CXCL12)可刺激内皮细胞表达跨膜糖蛋白,并通过其RGD基序与白细胞整合素α5β1直接互作,进而调控白细胞的跨内皮迁移过程。白细胞与内皮细胞表面的多种黏附分子发生紧密相互作用,可触发内皮屏障局部开放,驱动白细胞外渗,介导免疫细胞向炎症部位迁移,直接参与炎症发生[45]。Sullivan等[46]研究发现,以沙门氏菌或LPS诱导小鼠炎症反应后,肠黏膜中性粒细胞的跨内皮迁移仅局限于黏膜下血管区域,且依赖于CXC趋化因子配体1(CXCL1)和CXC趋化因子配体2(CXCL2)的表达。C型凝集素受体的二聚化可改变其配体结合能力,进而调节免疫反应[47]。Xue等[48]研究发现,C型凝集素受体Dectin-1拮抗剂昆布多糖(laminarin)可通过抑制TLR4-NF-κB和脾酪氨酸激酶(Syk)/NF-κB信号通路的激活,促进小胶质细胞由M1表型向M2表型转化。
为探究mtr-miR159a在趋化因子信号通路中的调控靶点及对通路中关键基因的影响,本研究采用qRT-PCR技术检测趋化因子信号通路中核心靶基因及关键节点基因的表达情况。结果表明,mtr-miR159a可显著调控趋化因子信号通路关键基因的表达,并可能通过靶向CCR5影响CXCL8、CCL2及NFKBIZ的表达。已有研究证实,CCR5作为趋化因子受体家族的核心成员,可通过介导免疫细胞迁移和信号传导,在炎症反应进程中发挥关键作用[49]。Zhao等[50]研究表明,CCR5可通过介导c-Jun/c-Fos信号通路调控CCL2的转录,且其表达量与NF-κB信号通路活性呈正相关。Song等[51]研究发现,CCR5可通过与CCL2等配体结合调控NF-κB信号通路,并影响中性粒细胞、淋巴细胞和巨噬细胞的浸润过程。相关研究表明,CXCL8主要介导中性粒细胞的趋化与浸润,是炎症早期启动的标志性分子[52]。NFKBIZ作为NF-κB信号通路的核内负调控因子,主要通过与细胞核内的NF-κB结合来抑制已激活的NF-κB信号通路,最终导致NF-κB信号通路下游基因失活[53]。综上所述,mtr-miR159a可能通过靶向CCR5促进NFKBIZ表达,进而抑制NF-κB信号通路活性,并降低趋化因子关键基因CXCL8和CCL2的表达,但mtr-miR159a与靶基因的具体靶向调控关系仍需通过Western blot及双荧光素酶报告基因试验进一步验证。

4 结论

mtr-miR159a过表达可抑制LPS诱导的bMECs炎症反应,同时抑制细胞凋亡并促进细胞增殖,其作用机制可能是通过靶向CCR5调控趋化因子信号通路关键基因表达,减轻bMECs的炎症反应、维持细胞正常增殖并抑制细胞异常凋亡,进而缓解奶牛乳腺炎的发生。
[1]
CUCCATO M, DIVARI S, GIANNUZZI D, et al. Extracellular vesicle miRNome during subclinical mastitis in dairy cows[J]. Veterinary Research, 2024, 55(1):112.

[2]
ROMÃO BONSAGLIA E C, ROSSI B F, POSSEBON F S, et al. In vitro adhesion and invasion rates of Staphylococcus aureus isolated from mastitic cows are modulated by the agr system and MSCRAMM genes[J]. Veterinary Sciences, 2025, 12(3):270.

[3]
LI Y M, CHENG Z Q, MA W T, et al. Effect of exogenous melatonin on performance and mastitis in dairy cows[J]. Veterinary Sciences, 2024, 11(9):431.

[4]
TONG X F, BARKEMA H W, NOBREGA D B, et al. Virulence of bacteria causing mastitis in dairy cows:a literature review[J]. Microorganisms, 2025, 13(1):167.

[5]
GILBERT F B, CUNHA P, JENSEN K, et al. Differential response of bovine mammary epithelial cells to Staphylococcus aureus or Escherichia coli agonists of the innate immune system[J]. Veterinary Research, 2013, 44(1):40.

[6]
LI J D, YIN P, GONG P, et al. 8-methoxypsoralen protects bovine mammary epithelial cells against lipopolysaccharide-induced inflammatory injury via suppressing JAK/STAT and NF-κB pathway[J]. Microbiology and Immunology, 2019, 63(10):427-437.

[7]
SADEGHI M H, MINAEI S, ASHOURPOUR M, et al. Leukemia miRNA electrochemical biosensors[J]. Clinica Chimica Acta, 2026, 578:120570.

[8]
DATTA N, JOHNSON C, KAO D N, et al. MicroRNA-based therapeutics for inflammatory disorders of the microbiota-gut-brain axis[J]. Pharmacological Research, 2023, 194:106870.

[9]
EMAMI NEJAD A, MOSTAFAVI ZADEH S M, NICKHO H, et al. The role of microRNAs involved in the disorder of blood-brain barrier in the pathogenesis of multiple sclerosis[J]. Frontiers in Immunology, 2023, 14:1281567.

[10]
徐欣然, 姚鑫鑫, 房子豪, 等. LPS对乳腺上皮细胞来源外泌体中bta-miR-224和bta-miR-146a表达的影响[J]. 华北农学报, 2024, 39(S1):305-311.

XU X R, YAO X X, FANG Z H, et al. The expressions of bta-miR-224 and bta-miR-146a in exosomes derived from mammary epithelial cells treated with LPS[J]. Acta Agriculturae Boreali-Sinica, 2024, 39(S1):305-311. (in Chinese)

[11]
焦鹏. 奶牛乳房炎相关miR-223的表达及其在乳腺上皮细胞炎症中的功能研究[D]. 硕士学位论文. 银川: 宁夏大学, 2022.

JIAO P.Expression of mastitis related miR-223 in dairy cow and its roles in inflammation of bovine mammary epithelial cells[D].Master’s Thesis. Yinchuan: Ningxia University, 2022. (in Chinese)

[12]
任倩倩. miR-382在奶牛乳房炎中的分子调控作用[D]. 硕士学位论文. 银川: 宁夏大学, 2022.

REN Q Q.Molecular regulatory function of miR-382 in bovine mastitis[D].Master’s Thesis. Yinchuan: Ningxia University, 2022. (in Chinese)

[13]
CHIN A R, FONG M Y, SOMLO G, et al. Cross-kingdom inhibition of breast cancer growth by plant miR159[J]. Cell Research, 2016, 26(2):217-228.

[14]
ALLEN R S, LI J Y, STAHLE M I, et al. Genetic analysis reveals functional redundancy and the major target genes of the Arabidopsis miR159 family[J]. Proceedings of the National Academy of Sciences, 2007, 104(41):16371-16376.

[15]
PALATNIK J F, ALLEN E, WU X L, et al. Control of leaf morphogenesis by microRNAs[J]. Nature, 2003, 425(6955):257-263.

[16]
李波娣. 大豆miR159家族的鉴定及miR159e功能初探[D]. 硕士学位论文. 广州: 华南农业大学, 2018.

LI B D. Identification of soybean miR159 family and functional analysis of miR159e[D]. Master’s Thesis. Guangzhou: South China Agricultural University, 2018. (in Chinese)

[17]
LIU J C, WANG F, SONG H Z, et al. Soybean-derived gma-miR159a alleviates colon tumorigenesis by suppressing TCF7/MYC in mice[J]. The Journal of Nutritional Biochemistry, 2021, 92:108627.

[18]
DUAN H J, LI S J, LI C W, et al. Alfalfa xeno-miR159a regulates bovine mammary epithelial cell proliferation and milk protein synthesis by targeting PTPRF[J]. Scientific Reports, 2024, 14(1):9117.

[19]
GEBEYEW K, MI H, LIU Y, et al. Differential immunological responses in lamb rumen and colon to alfalfa hay and wheat straw in a concentrate-rich diet:insights into microbe-host interactions[J]. mSystems, 2024, 9(10):e0048324.

[20]
胡雅丽. 饲粮添加苜蓿草粉对和田黑鸡生产性能、肉质及血液生化指标的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2022.

HU Y L. Effect of alfalfa meal on growth performance,meat quality and serum biochemical indexes of Hetian black chicken[D]. Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2022. (in Chinese)

[21]
CHOI K C, HWANG J M, BANG S J, et al. Chloroform extract of alfalfa (Medicago sativa) inhibits lipopolysaccharide-induced inflammation by downregulating ERK/NF-κB signaling and cytokine production[J]. Journal of Medicinal Food, 2013, 16(5):410-420.

[22]
贾晶莹. mtr-miR168b靶向CPT1A对BMECs脂滴生成的调控研究[D]. 硕士学位论文. 银川: 宁夏大学, 2023.

JIA J Y. Regulation of lipid droplet production in BMECs by mtr-miR168b targeting CPT1A[D]. Master’s Thesis. Yinchuan: Ningxia University, 2023. (in Chinese)

[23]
LI Y H, REN Q Q, WANG X P, et al. Bta-miR-199a-3p inhibits LPS-induced inflammation in bovine mammary epithelial cells via the PI3K/AKT/NF-κB signaling pathway[J]. Cells, 2022, 11(21):3518.

[24]
TSUGAMI Y, WAKASA H, KAWAHARA M, et al. Adverse effects of LPS on membrane proteins in lactating bovine mammary epithelial cells[J]. Cell and Tissue Research, 2021, 384(2):435-448.

[25]
DIAZ M F, VAIDYA A B, EVANS S M, et al. Biomechanical forces promote immune regulatory function of bone marrow mesenchymal stromal cells[J]. Stem Cells, 2017, 35(5):1259-1272.

[26]
樊嘉琦, 贾芳, 李宇思, 等. 黄芪多糖及黄芪甲苷干预对脂多糖诱导的奶牛乳腺上皮细胞炎症的作用[J]. 华南农业大学学报, 2022, 43(4):16-28.

FAN J Q, JIA F, LI Y S, et al. Effects of astragalus polysaccharide and astragaloside Ⅳ on lipopolysaccharides-induced inflammation of bovine mammary epithelial cells[J]. Journal of South China Agricultural University, 2022, 43(4):16-28. (in Chinese)

[27]
LI L, TANG W, ZHAO M, et al. Study on the regulation mechanism of lipopolysaccharide on oxidative stress and lipid metabolism of bovine mammary epithelial cells[J]. Physiological Research, 2021, 70(5):777-785.

[28]
MELTON E, QIU H Y. Interleukin-1β in multifactorial hypertension:inflammation,vascular smooth muscle cell and extracellular matrix remodeling,and non-coding RNA regulation[J]. International Journal of Molecular Sciences, 2021, 22(16):8639.

[29]
KANG D Y, SP N, JO E S, et al. Non-toxic sulfur inhibits LPS-induced inflammation by regulating TLR-4 and JAK2/STAT3 through IL-6 signaling[J]. Molecular Medicine Reports, 2021, 24(1):485.

[30]
ZELOVÁ H, HOŠEK J. TNF-α signalling and inflammation:interactions between old acquaintances[J]. Inflammation Research, 2013, 62(7):641-651.

[31]
GUAN Y K, PEIFFER B, FENG D C, et al. IL-8+ neutrophils drive inexorable inflammation in severe alcohol-associated hepatitis[J]. The Journal of Clinical Investigation, 2024, 134(9):e178616.

[32]
冯芬, 李彦霞, 王晋鹏, 等. lncRNA TCONS_00143126在奶牛乳腺上皮细胞炎症反应中的表达及生物信息学分析[J]. 华北农学报, 2025, 40(1):199-206.

FENG F, LI Y X, WANG J P, et al. Expression and bioinformatics analysis of lncRNA TCONS_00143126 in inflammatory response of bovine mammary epithelial cells[J]. Acta Agriculturae Boreali-Sinica, 2025, 40(1):199-206. (in Chinese)

[33]
PU J H, LI R, ZHANG C L, et al. Expression profiles of miRNAs from bovine mammary glands in response to Streptococcus agalactiae-induced mastitis[J]. Journal of Dairy Research, 2017, 84(3):300-308.

[34]
ÖZDEMIR S. Expression profiling of microRNAs in the Mycoplasma bovis infected mammary gland tissue in Holstein Friesian cattle[J]. Microbial Pathogenesis, 2020, 147:104426.

[35]
EKEN S M, CHRISTERSDOTTIR T, WINSKI G, et al. MiR-29b mediates the chronic inflammatory response in radiotherapy-induced vascular disease[J]. JACC:Basic to Translational Science, 2019, 4(1):72-82.

[36]
SUN X J, ZHANG H X. MiR-451 elevation relieves inflammatory pain by suppressing microglial activation-evoked inflammatory response via targeting TLR4[J]. Cell and Tissue Research, 2018, 374(3):487-495.

[37]
ZHANG L, HOU D X, CHEN X, et al. Exogenous plant MIR168a specifically targets mammalian LDLRAP1:evidence of cross-kingdom regulation by microRNA[J]. Cell Research, 2012, 22(1):107-126.

[38]
CHEN Q, ZHANG F, DONG L, et al. SIDT1-dependent absorption in the stomach mediates host uptake of dietary and orally administered microRNAs[J]. Cell Research, 2021, 31(3):247-258.

[39]
LI S J, JIA J Y, LIU B B, et al. Screening of mtr-miR156a from exosomes of dairy cow blood to milk and its regulatory effect on milk protein synthesis in BMECs[J]. BMC Genomics, 2024, 25(1):882.

[40]
YAN L, CAO Y Q, HOU L H, et al. Ginger exosome-like nanoparticle-derived miRNA therapeutics:a strategic inhibitor of intestinal inflammation[J]. Journal of Advanced Research, 2025, 69:1-15.

[41]
FREIMARK B D, BLEZINGER H P, FLORACK V J, et al. Cationic lipids enhance cytokine and cell influx levels in the lung following administration of plasmid:cationic lipid complexes[J]. Journal of Immunology, 1998, 160(9):4580-4586.

[42]
NORMAN J, DENHAM W, DENHAM D, et al. Liposome-mediated,nonviral gene transfer induces a systemic inflammatory response which can exacerbate pre-existing inflammation[J]. Gene Therapy, 2000, 7(16):1425-1430.

[43]
HUGHES C E, NIBBS R J B. A guide to chemokines and their receptors[J]. The FEBS Journal, 2018, 285(16):2944-2971.

[44]
ROSSI E, SANZ-RODRIGUEZ F, ELENO N, et al. Endothelial endoglin is involved in inflammation:role in leukocyte adhesion and transmigration[J]. Blood, 2013, 121(2):403-415.

[45]
WANG S P, WANG B B, SHI Y, et al. Mechanosensation by endothelial PIEZO1 is required for leukocyte diapedesis[J]. Blood, 2022, 140(3):171-183.

[46]
SULLIVAN D P, BUI T, MULLER W A, et al. In vivo imaging reveals unique neutrophil transendothelial migration patterns in inflamed intestines[J]. Mucosal Immunology, 2018, 11(6):1571-1581.

[47]
LI F, WANG H, LI Y Q, et al. C-type lectin receptor 2d forms homodimers and heterodimers with TLR2 to negatively regulate IRF5-mediated antifungal immunity[J]. Nature Communications, 2023, 14(1):6718.

[48]
XUE F, ZHANG M, ZHAO R Y, et al. Dectin-1 participates in neuroinflammation and dopaminergic neurodegeneration through synergistic signaling crosstalk with TLR4[J]. Brain,Behavior,and Immunity, 2025, 126:260-273.

[49]
FANTUZZI L, TAGLIAMONTE M, GAUZZI M C, et al. Dual CCR5/CCR2 targeting:opportunities for the cure of complex disorders[J]. Cellular and Molecular Life Sciences, 2019, 76(24):4869-4886.

[50]
ZHAO Y X, WANG L Q, DONG R, et al. Expression of CCL2 signaling pathway genes in patients with periodontitis and atherosclerosis[J]. Histology and Histopathology, 2024, 39(11):1537-1546.

[51]
SONG Y D, SONG Y H, LIU S X, et al. Inhibition of inflammatory cell infiltration by antagonistic peptides that specifically bind to CCR5 via regulation of the NF-κB signaling pathway in rats with colitis[J]. Archives of Medical Science, 2024, 20(6):2022-2033.

[52]
CAMBIER S, GOUWY M, PROOST P. The chemokines CXCL8 and CXCL12:molecular and functional properties,role in disease and efforts towards pharmacological intervention[J]. Cellular & Molecular Immunology, 2023, 20(3):217-251.

[53]
GUO D F, ZHANG M, WEI T J, et al. NFKBIZ regulates NFκB signaling pathway to mediate tumorigenesis and metastasis of hepatocellular carcinoma by direct interaction with TRIM16[J]. Cellular and Molecular Life Sciences, 2024, 81(1):167.

文章导航

/