研究论文

肠致病性大肠杆菌感染BALB/c小鼠腹泻模型建立、评价及肠道菌群特征研究

  • 周俊华 , 1 ,
  • 熊敏芬 2 ,
  • 高鑫 1 ,
  • 黄华强 2 ,
  • 叶秋香 1 ,
  • 邹彩霞 , 1, *
展开
  • 1 广西大学动物科学技术学院, 南宁 530005
  • 2 广西农业职业技术大学畜牧研究院, 南宁 530007
*邹彩霞,研究员,博士生导师,E-mail:

周俊华(1986—),女,河南许昌人,博士研究生,研究方向为益生菌与动物疾病防治。E-mail:

Office editor: 田艳明

收稿日期: 2026-05-05

  网络出版日期: 2026-08-13

基金资助

广西科技计划项目(桂科AD23026011)

Establishment, Evaluation and Gut Microbiota Profiling of Diarrhea Model in BALB/c Mice Induced by Enteropathogenic Escherichia coli

  • ZHOU Junhua , 1 ,
  • XIONG Minfen 2 ,
  • GAO Xin 1 ,
  • HUANG Huaqiang 2 ,
  • YE Qiuxiang 1 ,
  • ZOU Caixia , 1, *
Expand
  • 1 College of Animal Science and Technology, Guangxi University, Nanning 530005, China
  • 2 Animal Husbandry Research Institute, Guangxi Vocational University of Agriculture, Nanning 530007, China
*professor, E-mail:

Received date: 2026-05-05

  Online published: 2026-08-13

摘要

本试验旨在构建能有效模拟肠致病性大肠杆菌(EPEC)关键临床特征的小鼠模型,并解析其肠道菌群特征。选取24只3周龄体重为(9.89±0.83) g的无特定病原体(SPF)级雄性BALB/c小鼠,适应性饲养4 d后随机分为对照组(CK组)和模型组(EPEC组),每组12只(n=12)。2组小鼠连续3 d自由饮用含混合抗生素的无菌水;第4天更换为普通无菌水;第5~7天,CK组2次/d灌胃无菌磷酸盐缓冲液(PBS,20 μL/g BW),EPEC组同步灌胃等量浓度为1.7×10¹⁰ CFU/mL的EPEC菌悬液;第8天进行取样分析。结果表明:1)感染后第3天,EPEC组小鼠出现中度腹泻症状,腹泻评分为2.14,体重变化率为-9.11%。2)与CK组相比,EPEC组血清丙二醛、免疫球蛋白A(IgA)、肿瘤坏死因子-α(TNF-α)、连蛋白和D-乳酸(D-LA)含量极显著提高(P<0.01),血清免疫球蛋白M(IgM)含量显著提高(P<0.05);同时,血清总抗氧化能力极显著降低(P<0.01),血清总超氧化物歧化酶活性显著降低(P<0.05)。3)2组小鼠十二指肠均无病理损伤;EPEC组空肠上皮坏死脱落,回肠绒毛萎缩破损、固有层暴露,空肠和回肠绒毛高度和绒隐比极显著低于CK组(P<0.01);结肠上皮坏死脱落、腺体结构紊乱并伴有炎性浸润,结肠隐窝深度极显著低于CK组(P<0.01)。4)与CK组相比,EPEC组脾脏指数极显著提高(P<0.01)。5)与CK组相比,EPEC组盲肠埃希氏菌属、肠杆菌目、假单胞菌门、γ-变形菌纲和丹毒丝菌目相对丰度显著提高(P<0.05),盲肠放线菌门、拟杆菌门、拟杆菌纲、拟杆菌目和理研菌科RC9肠道群相对丰度显著降低(P<0.05);同时,EPEC组盲肠菌群阳离子抗菌肽耐药性,丙酸代谢,生物膜形成-大肠杆菌,谷胱甘肽代谢,β-内酰胺抗性,缬氨酸、亮氨酸和异亮氨酸降解,以及胞外多糖生物合成通路的相对丰度显著上调(P<0.05),磷壁酸生物合成和糖酵解/糖异生通路的相对丰度显著下调(P<0.05)。6)Pearson相关性分析显示,盲肠假单胞菌门和埃希氏菌属相对丰度与腹泻评分,血清TNF-α、D-LA、连蛋白、IgM和IgA含量,以及脾脏指数呈极显著正相关(P<0.01);盲肠拟杆菌门相对丰度与血清IgM和TNF-α含量呈极显著负相关(P<0.01)。综上所述,本试验成功建立了EPEC感染BALB/c小鼠腹泻模型,复现了腹泻、肠道黏附/消除(A/E)损伤和体重下降等特征,并解析了EPEC感染小鼠的特征肠道菌群与代谢通路,可为深入研究其致病机制及评价防控产品提供有效动物模型和数据参考。

本文引用格式

周俊华 , 熊敏芬 , 高鑫 , 黄华强 , 叶秋香 , 邹彩霞 . 肠致病性大肠杆菌感染BALB/c小鼠腹泻模型建立、评价及肠道菌群特征研究[J]. 动物营养学报, 2026 , 38(8) : 6202 -6217 . DOI: 10.12418/CJAN2026.496

Abstract

This study aimed to establish a mouse model that effectively simulated the key clinical features of enteropathogenic Escherichia coli (EPEC) infection and to characterize the associated gut microbiota. Twenty four 3-week-old male BALB/c mice of specific pathogen free (SPF) grade were selected. After 4 days of acclimatization feeding, they were randomly divided into a control group (CK group) and a model group (EPEC group) with 12 mice in each group (n=12). Mice in both groups were provided with sterile water containing a mixture of antibiotics ad libitum for 3 consecutive days. On day 4, this was replaced with ordinary sterile water. From days 5 to 7, mice in CK group were intragastrically administered sterile phosphate buffered saline (PBS) twice daily (20 μL/g BW), while mice in EPEC group were synchronously administered an equal volume of EPEC bacterial suspension at a concentration of 1.7×10¹⁰ CFU/mL. On day 8, sampling analysis was conducted. The results showed as follows: 1) on day 3 post-infection, mice in EPEC group exhibited moderate diarrhea symptoms, with a diarrhea score of 2.14 and a body weight change rate of -9.11%. 2) Compared with CK group, the serum contents of malondialdehyde, immunoglobulin A (IgA), tumor necrosis factor-α (TNF-α), zonulin and D-lactic acid (D-LA) in EPEC group were extremely significantly increased (P<0.01), and the serum immunoglobulin M (IgM) content was significantly increased (P<0.05); meanwhile, the serum total antioxidant capacity was extremely significantly decreased (P<0.01), and the serum total superoxide dismutase activity was significantly decreased (P<0.05). 3) No pathological damage was observed in the duodenum of mice in either CK group or EPEC group. In EPEC group, the jejunum exhibited epithelial necrosis and exfoliation, and the ileum showed villus atrophy, disruption, and lamina propria exposure, with the villus height and the villus height to crypt depth ratio being extremely significantly decreased compared with CK group (P<0.01); in colon, epithelial necrosis, exfoliation, glandular structural disarray with inflammatory infiltration were observed, and the crypt depth was extremely significantly decreased compared with CK group (P<0.01). 4) Compared with CK group, the spleen index in EPEC group was extremely significantly increased (P<0.01). 5) Compared with CK group, EPEC group exhibited a significant increase in the relative abundances of Escherichia, Enterobacterales, Pseudomonadota, Gammaproteobacteria and Erysipelotrichales in cecum (P<0.05); conversely, a significant decrease in the relative abundances of Actinomycetota, Bacteroidota, Bacteroidia, Bacteroidales and Rikenellaceae_RC9_gut_group in cecum was observed (P<0.05). Meanwhile, EPEC group showed significantly upregulated relative abundances of pathways including cationic antimicrobial peptide (CAMP) resistance, propionate metabolism, biofilm formation-Escherichia coli, glutathione metabolism, beta-lactam resistance, valine, leucine and isoleucine degradation, and exopolysaccharide biosynthesis (P<0.05); conversely, the relative abundances of pathways for teichoic acid biosynthesis and glycolysis/gluconeogenesis were significantly downregulated (P<0.05). 6) Pearson correlation analysis revealed that the relative abundances of Pseudomonadota and Escherichia in cecum were extremely significantly positively correlated with diarrhea score, serum contents of TNF-α, D-LA, zonulin, IgM and IgA, and spleen index (P<0.01); conversely, the Bacteroidota relative abundance in cecum showed an extremely significant negative correlation with serum contents of IgM and TNF-α (P<0.01). In conclusion, a diarrhea model in BALB/c mice induced by EPEC was successfully established in this experiment. This model recapitulates key features such as diarrhea, attaching and effacing (A/E) lesions in intestine, and body weight loss. Furthermore, the characteristic gut microbiota and metabolic pathways associated with EPEC infection in mice are characterized. This study provides a valid animal model and relevant data for further investigation into the pathogenic mechanisms of EPEC and for evaluating potential prevention and control strategies.

肠致病性大肠杆菌(enteropathogenic Escherichia coli,EPEC)是一类可在肠道上皮细胞形成黏附/消除(attaching and effacing,A/E)特征性损伤、携带紧密黏附素基因且不表达志贺毒素的致泻性大肠杆菌(diarrheagenic Escherichia coli,DEC)[1]。作为典型的人兽共患肠道致病菌,EPEC是诱发婴幼儿及犊牛腹泻的核心病原菌之一。EPEC引起的腹泻不仅制约养殖业健康发展,降低产业经济效益,还可通过受污染的畜禽产品及环境接触实现跨宿主传播[2-3]。流行病学调查显示,腹泻犊牛和健康犊牛均可携带EPEC,且患病犊牛已成为多重耐药EPEC及耐药基因传播的重要储存宿主和传播载体,严重威胁公共卫生安全[4-6]。利用微生态制剂、酸化剂、中草药等替代抗生素的饲料添加剂缓解EPEC引起的腹泻是动物生产中的常用策略。有效防控策略的制定,有赖于深入阐明EPEC的致病机制,而稳定的动物模型是解析该机制及评价抗生素替代品作用效果的核心工具。
在现有研究中,常以啮齿类柠檬酸杆菌(Citrobacter rodentium)作为EPEC的替代菌株,二者虽均可诱导A/E病变,但在宿主组织嗜性、肠道病理损伤进程及临床表征方面存在差异,其中啮齿类柠檬酸杆菌难以模拟EPEC的自然感染特征,存在一定局限性[7]。在自然状态下,成年小鼠对致病性大肠杆菌普遍不易感[8],日龄、遗传背景及肠道固有菌群结构是决定EPEC定植能力及易感性的关键因素[9]。为克服小鼠对EPEC的天然抗性,构建稳定的EPEC感染模型,国内外研究多采用广谱抗生素预处理策略,通过扰动肠道共生菌群,提高小鼠对肠道致病菌的易感性,且该方法已成功用于产肠毒素大肠杆菌(enterotoxigenic Escherichia coli,ETEC)、空肠弯曲杆菌(Campylobacter jejuni)、福氏志贺氏菌(Shigella flexneri)及EPEC等多种肠道致病菌小鼠腹泻模型的构建[10-13]
现有已报道的EPEC小鼠感染模型多以C57BL/6小鼠为试验动物[9,13]。不同品系小鼠的肠道基础菌群结构和黏膜免疫应答模式存在差异,BALB/c小鼠遗传背景清晰且肠道黏膜免疫优势显著。抗生素预处理通过破坏肠道菌群屏障提升致病菌易感性,间接证明肠道菌群在致病菌感染进程中发挥关键调控作用。目前,针对EPEC的致病机制及感染后宿主的肠道菌群结构特征尚有许多不明之处。因此,本试验拟构建EPEC感染BALB/c小鼠腹泻模型,通过肠道组织病理损伤、血清氧化应激、肠道通透性、免疫球蛋白、炎症因子等指标对所建立模型进行评价,并解析其特征肠道菌群及功能,以期为深入揭示EPEC致病机制及开展抗生素替代品的评价提供有效的动物模型及数据基础。

1 材料与方法

1.1 菌株复苏及培养

EPEC标准菌株(菌株编号:CICC 24189)购自中国工业微生物菌种保藏管理中心。将保存于-80 ℃冰箱的EPEC甘油菌在生物安全柜中用接种环挑取,并在LB固体培养基上划线,在37 ℃恒温培养箱中倒置培养8 h;挑取生长状况良好的单菌落至LB液体培养基中,37 ℃恒温摇床150 r/min培养12 h,4 ℃、4 000×g离心8 min,菌泥用磷酸盐缓冲液(PBS)洗涤2次,调整菌液浓度为1.7×10¹⁰ CFU/mL。

1.2 动物模型的构建

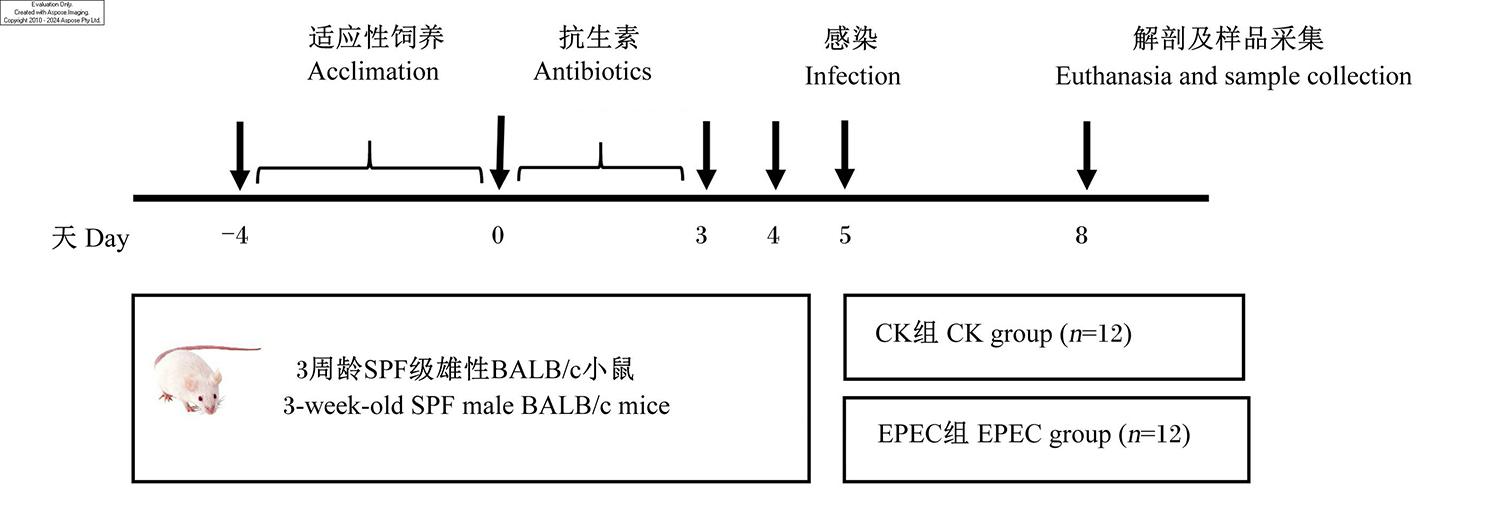
选取24只3周龄体重为(9.89±0.83) g的无特定病原体(SPF)级雄性BALB/c小鼠(购自湖北贝恩特生物科技有限公司),适应性饲养4 d后随机分为对照组(CK组)和模型组(EPEC组),每组12只(n=12)。2组小鼠连续3 d自由饮用含混合抗生素(甲硝唑1.0 g/L、万古霉素0.5 mg/mL、硫酸庆大霉素200 mg/L、硫酸黏菌素200 mg/L)的无菌水;第4天更换为普通无菌水;第5~7天,CK组2次/d灌胃无菌PBS(20 μL/g BW),EPEC组同步灌胃等量浓度为1.7×10¹⁰ CFU/mL的EPEC菌悬液,灌胃剂量参照Bolick等[10]和Ledwaba等[13]并做适当调整。EPEC感染模型试验时间进程如图1所示。
图1 EPEC感染模型试验时间进程

Fig.1 Experimental timeline of EPEC infection model

试验期间每天观察并记录小鼠体重、粪便性状及粪便颜色。饲养环境温度控制在20~23 ℃,光照周期为12 h光照/12 h黑暗循环。本试验严格遵循《实验动物 福利伦理审查指南》(GB/T 35892—2018)[14]的相关要求,以小鼠出现弓背、被毛蓬松杂乱、活动迟缓等痛苦临床体征作为仁慈终点。试验方案通过广西大学实验动物伦理委员会审批,伦理批准编号:GXU-2025-383。

1.3 样品采集及处理

试验第8天,各组分别随机选取4只小鼠进行采样分析,各项检测指标均采用同一批小鼠测定,生物学重复数均为n=4。按20 μL/g BW腹腔注射1.25%即用型三溴乙醇麻醉小鼠,眼球采血,4 ℃、2 000×g离心10 min,分离血清用于检测氧化应激、炎症因子、免疫球蛋白及肠道通透性等指标;采血后,小鼠颈椎脱臼处死,在超净工作台打开腹腔,迅速摘除脾脏进行称重,用于脾脏指数的检测;采集盲肠内容物,液氮速冻后于-80 ℃保存,用于微生物群落的检测分析;分离十二指肠、空肠、回肠和结肠,用预冷PBS清洗后,置于4%多聚甲醛中固定。

1.4 主要试剂及仪器

主要试剂:LB培养基购自青岛高科技工业园海博生物技术有限公司,丙二醛(MDA)、总超氧化物歧化酶(T-SOD)和总抗氧化能力(T-AOC)检测试剂盒购自武汉赛维尔生物科技有限公司,D-乳酸(D-LA)和连蛋白检测试剂盒购自北京索莱宝科技有限公司,肿瘤坏死因子-α(TNF-α)检测试剂盒购自赛默飞世尔科技(中国)有限公司,免疫球蛋白A(IgA)、免疫球蛋白M(IgM)和免疫球蛋白G(IgG)检测试剂盒购自杭州联科生物技术股份有限公司,三溴乙醇购自南京安杰优生物科技有限公司,基因组DNA提取试剂盒购自北京百泰克生物技术有限公司。
主要仪器包括:HVE-50型高压灭菌锅(Hirayama,日本),DW-HL528型超低温冰箱(中科美菱低温科技股份有限公司),SW-CJ-2F型超净工作台(苏州安泰空气技术有限公司),ESCO Airstream® Class Ⅱ生物安全柜(新加坡艺思高科技有限公司),TLG20M型离心机(长沙英泰仪器有限公司),MIX-M型旋涡混匀仪[拓赫机电科技(上海)有限公司],NHWY-100B型恒温摇床(常州诺基仪器有限公司),Epoch酶标检测仪(BioTek,美国),SWE-CX63型显微镜(武汉赛维尔生物科技有限公司)。

1.5 检测指标及方法

1.5.1 体重变化率、脾脏指数和腹泻评分

分别于试验第0(开始)、5、6、7和8天08:00称量小鼠体重,并计算感染后第1、2和3天体重相对于感染前体重的变化率。体重变化率计算公式如下:

体重变化率(%)=[(末体重-初体重)/初体重]×100。

脾脏指数计算公式如下:

脾脏指数(%)=100×脾脏重(mg)/体重(g)。

参照Kurita等[15]的方法对小鼠感染后腹泻情况进行评分,评分标准如下:0分(正常),粪便成形并呈颗粒状;1分(轻微腹泻),粪便微湿、质软;2分(中度腹泻),粪便湿润、不成形,肛周被毛中度染色;3分(重度腹泻),水样便,肛周被毛严重染色。

1.5.2 血清相关指标

血清于4 ℃下解冻,采用水溶性四唑盐显色法测定血清D-LA含量,采用硫代巴比妥酸法测定血清MDA含量,采用黄嘌呤氧化酶法测定血清T-SOD活性,采用2,2'-联氮-双-3-乙基苯并噻唑啉-6-磺酸(ABTS)法测定血清T-AOC,上述指标均按照检测试剂盒说明书进行检测;采用酶联免疫吸附测定(ELISA)试剂盒测定血清TNF-α、IgA、IgM、IgG和连蛋白含量。

1.5.3 肠道组织形态

肠道组织经4%多聚甲醛常温固定、脱水后进行石蜡包埋,制备成5 μm厚切片后再进行苏木精-伊红(HE)染色,然后进行显微镜镜检,并进行图像采集分析。采用ImageJ 1.4图像分析软件测量绒毛高度(VH)和隐窝深度(CD),每张切片测量5~10根绒毛[16],并计算绒隐比(V/C)。

1.5.4 盲肠微生物群落

采用磁珠法,并利用粪便基因组DNA提取试剂盒提取盲肠微生物总DNA。选用16S rRNA基因V3~V4区引物(341F/805R)进行PCR扩增,反应体系为25 μL,包含高保真聚合酶预混液、上下游引物及50 ng模板DNA,以双蒸水补足体系。扩增程序为98 ℃预变性30 s;98 ℃ 10 s,54 ℃ 30 s,72 ℃ 45 s,32个循环;72 ℃终延伸10 min。PCR产物经纯化、定量和文库质检后,利用NovaSeq 6000平台完成2×250 bp双端测序。原始序列经质控拼接、分裂扩增子去噪算法2(divisive amplicon denoising algorithm 2,DADA2)去噪过滤后得到扩增子序列变异(amplicon sequence variants,ASVs)及丰度表,剔除单丰度序列;基于SILVA数据库(https://www.arb-silva.de)完成物种注释。alpha多样性指数采用Wilcoxon秩和检验进行分析,采用基于加权UniFrac(weighted UniFrac)距离矩阵的主坐标分析(principal coordinates analysis,PCoA)进行beta多样性可视化分布,并利用置换多元方差分析(permutational multivariate analysis of variance,PERMANOVA)进行组间差异分析。采用Wilcoxon秩和检验和线性判别分析(LDA)效应大小(linear discriminant analysis effect size,LEfSe)分析进行物种差异分析[17],筛选组间相对丰度差异显著的菌群,设定阈值为LDA得分≥3.0和P<0.05,并绘制差异物种柱状图。利用PICRUSt2软件结合京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)数据库(https://www.kegg.jp)进行菌群功能通路预测。采用Pearson相关性分析探究差异菌群与宿主指标的相关性,P<0.05为显著相关,P<0.01为极显著相关。所有数据分析及图表可视化均通过R语言v 3.4.4完成。

1.6 数据统计分析

采用Excel 2016对试验数据进行初步处理,然后采用SPSS 23.0统计软件进行独立样本t检验,结果数据以“平均值±标准差”形式表示,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 EPEC感染对小鼠临床症状和腹泻评分的影响

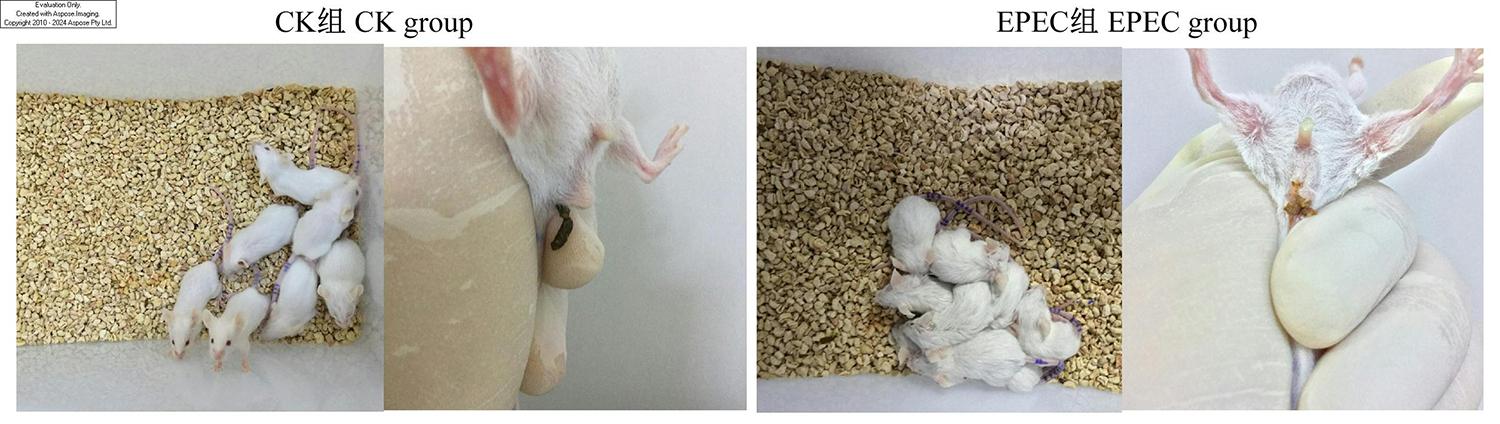
图2所示,CK组小鼠精神状态良好、活跃,尾部和肛周洁净,无明显污物及异常分泌物;EPEC组小鼠经连续3 d EPEC感染处理后,表现出精神萎靡、弓背蜷缩和活动减少等症状,同时伴随体重下降、肛周被稀便污染等腹泻特征。由表1可知,感染后第1、2和3天,EPEC组小鼠腹泻评分分别为1.54、1.68和2.14,呈现中度腹泻,提示EPEC感染小鼠腹泻模型构建成功。
图2 小鼠临床症状代表性图片

Fig.2 Representative photographs of clinical symptoms of mice

2.2 EPEC感染对小鼠体重的影响

表2可知,试验第0天及感染前(试验第5天),2组间小鼠体重无显著差异(P>0.05)。感染后第1、2和3天(试验第6、7和8天),EPEC组小鼠体重显著或极显著低于CK组(P<0.05或P<0.01);同时,CK组体重变化率分别为4.07%、8.24%和10.52%,EPEC组体重变化率分别为-3.89%、-9.33%和-9.11%。结果提示,EPEC感染抑制BALB/c小鼠生长,导致体重显著降低。
表1 EPEC感染对小鼠腹泻评分的影响

Table 1 Effects of EPEC infection on diarrhea score of mice

项目
Items
CK组
CK group
EPEC组
EPEC group
t
t-value
P
P-value
感染后第1天 Day 1 post-infection 0.00±0.00 1.54±0.21 -22.985 0.006
感染后第2天 Day 2 post-infection 0.00±0.00 1.68±0.15 -34.293 <0.001
感染后第3天 Day 3 post-infection 0.00±0.00 2.14±0.32 -21.120 <0.001
表2 EPEC感染对小鼠体重的影响

Table 2 Effects of EPEC infection on body weight of mice

项目
Items
CK组
CK group
EPEC组
EPEC group
t
t-value
P
P-value
体重 Body weight/g
第0天 Day 0 11.91±0.80 11.71±0.39 0.453 0.666
第5天 Day 5 12.46±0.89 12.03±0.26 0.915 0.395
第6天 Day 6 12.97±0.94 11.56±0.32 2.827 0.030
第7天 Day 7 13.49±0.98 10.91±0.16 5.195 0.002
第8天 Day 8 13.77±0.97 10.94±0.25 5.611 0.001
体重变化率 Body weight change rate/%
感染后第1天 Day 1 post-infection 4.07±0.16 -3.89±0.68 22.679 <0.001
感染后第2天 Day 2 post-infection 8.24±0.10 -9.33±0.83 41.815 <0.001
感染后第3天 Day 3 post-infection 10.52±0.33 -9.11±1.13 33.149 <0.001

2.3 EPEC感染对小鼠肠道组织形态及通透性的影响

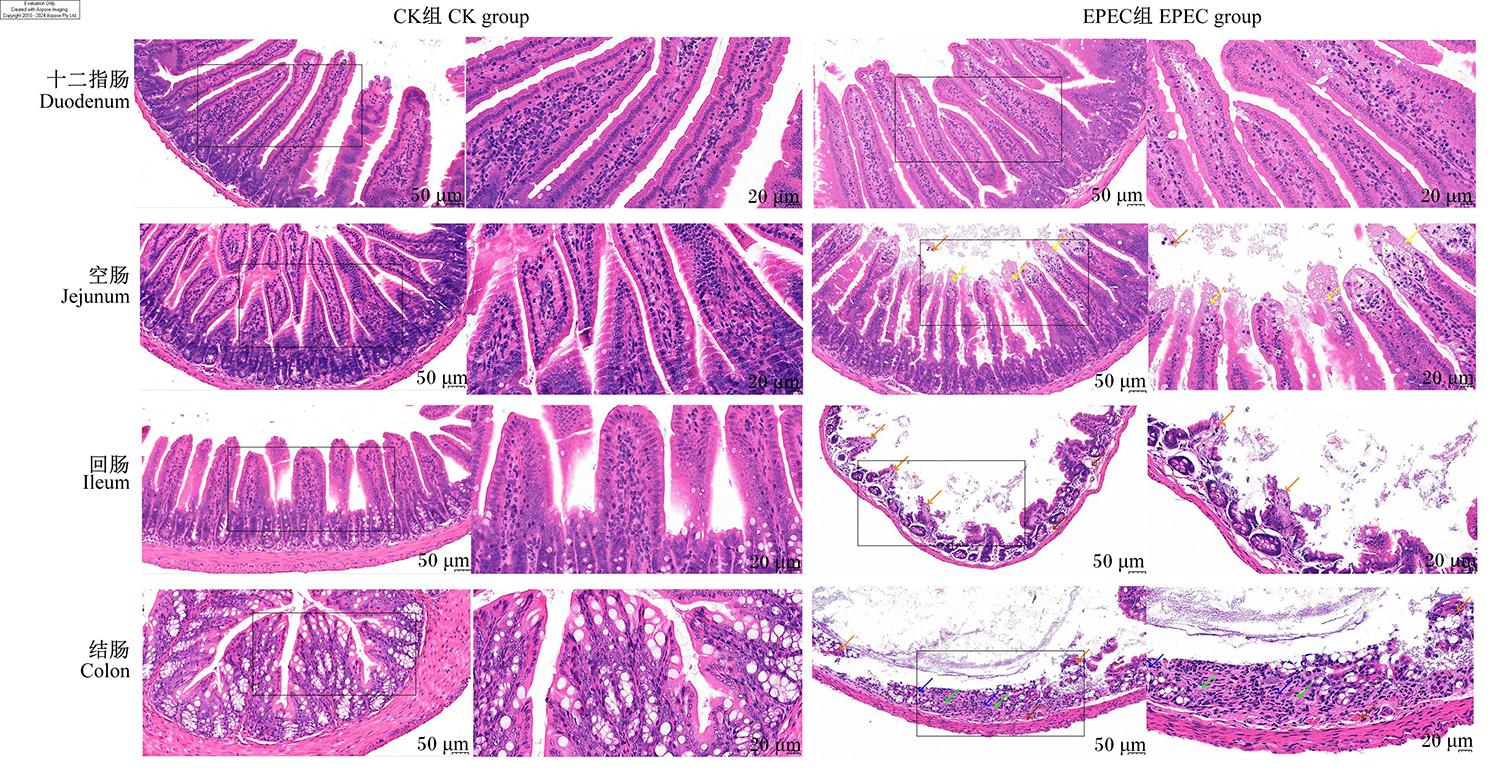
表3图3可知,2组小鼠十二指肠无明显病理损伤,2组间十二指肠VH、CD和V/C无显著差异(P>0.05);EPEC组空肠和回肠VH和V/C极显著低于CK组(P<0.01),且均伴有上皮细胞脱落、坏死等损伤;EPEC组结肠CD极显著低于CK组(P<0.01),伴有上皮细胞及肠腺坏死、纤维结缔组织增生等损伤;各肠段肌层均无明显异常。
图3 小鼠肠道组织切片HE染色代表性图片

橙色箭头:上皮细胞脱落;黄色箭头:上皮细胞坏死;绿色箭头:结缔组织增生;蓝色箭头:淋巴细胞浸润;棕色箭头:血管扩张/淤血。黑色方框表示放大视野位置。

Fig.3 Representative photographs of HE staining of intestinal tissue sections of mice

Orange arrows: epithelial cell shedding; yellow arrows: epithelial cell necrosis; green arrows: connective tissue hyperplasia; blue arrows: lymphocyte infiltration; brown arrows: vascular dilation/congestion. The black box indicated the position of magnified field of view.

表4可知,EPEC组小鼠血清连蛋白和D-LA含量极显著高于CK组(P<0.01),其中血清连蛋白含量从3 492.95 μg/mL升高至5 395.50 μg/mL,血清D-LA含量从0.83 μmol/mL升高至1.20 μmol/mL。结果提示,EPEC感染在一定程度上导致小鼠肠道出现部位特异性损伤,并促进肠道通透性相关标志物分泌。
表3 EPEC感染对小鼠肠道组织形态的影响

Table 3 Effects of EPEC infection on intestinal histomorphology of mice

项目
Items
CK组
CK group
EPEC组
EPEC group
t
t-value
P
P-value
十二指肠 Duodenum
绒毛高度 VH/μm 431.22±57.83 448.83±11.20 -0.598 0.572
隐窝深度 CD/μm 91.33±13.79 98.30±4.97 -0.951 0.378
绒隐比 V/C 4.75±0.47 4.58±0.32 0.604 0.568
空肠 Jejunum
绒毛高度 VH/μm 326.58±8.47 268.01±6.73 12.090 <0.001
隐窝深度 CD/μm 87.59±7.99 84.78±4.60 0.680 0.516
绒隐比 V/C 3.75±0.29 3.17±0.15 3.978 0.004
回肠 Ileum
绒毛高度 VH/μm 212.63±4.74 108.78±2.32 44.040 <0.001
隐窝深度 CD/μm 85.68±9.57 59.21±8.84 4.540 0.002
绒隐比 V/C 2.50±0.23 1.87±0.24 4.130 0.003
结肠 Colon
隐窝深度 CD/μm 176.86±8.59 96.90±6.32 16.759 <0.001
表4 EPEC感染对小鼠血清肠道通透性指标的影响

Table 4 Effects of EPEC infection on serum intestinal permeability indices of mice

项目
Items
CK组
CK group
EPEC组
EPEC group
t
t-value
P
P-value
连蛋白 Zonulin/(μg/mL) 3 492.95±350.05 5 395.50±270.29 -9.619 <0.001
D-乳酸 D-LA/(μmol/mL) 0.83±0.09 1.20±0.08 -6.802 <0.001

2.4 EPEC感染对小鼠氧化应激和免疫功能的影响

表5可知,与CK组相比,EPEC组小鼠血清MDA含量极显著提高(P<0.01),由8.77 μmol/L升高至13.41 μmol/L;血清T-SOD活性和T-AOC显著或极显著降低(P<0.05或P<0.01),分别由277.91 U/mL和1.35 mmol/L降低至208.63 U/mL和1.09 mmol/L,提示小鼠感染EPEC后,机体氧化损伤加重,抗氧化能力减弱。与CK组相比,EPEC组小鼠血清IgA和TNF-α含量极显著提高(P<0.01),血清IgM含量显著提高(P<0.05),分别由1 039.94 μg/mL、34.06 pg/mL和114.77 μg/mL升高至1 479.18 μg/mL、46.70 pg/mL和146.45 μg/mL;血清IgG含量略有升高,但无显著差异(P>0.05);脾脏指数极显著提高(P<0.01),提示EPEC感染可激活小鼠机体体液免疫应答,诱导促炎细胞因子释放,并导致脾脏发生反应性增生。
表5 EPEC感染对小鼠氧化应激和免疫功能的影响

Table 5 Effects of EPEC infection on oxidative stress and immune function of mice

项目
Items
CK组
CK group
EPEC组
EPEC group
t
t-value
P
P-value
氧化应激指标 Oxidative stress indices
总超氧化物歧化酶 T-SOD/(U/mL) 277.91±10.08 208.63±8.50 3.303 0.016
丙二醛 MDA/(μmol/L) 8.77±1.07 13.41±0.96 -6.434 0.001
总抗氧化能力 T-AOC/(mmol/L) 1.35±0.07 1.09±0.04 6.296 0.001
免疫相关指标 Immune-related indices
免疫球蛋白A IgA/(μg/mL) 1 039.94±92.10 1 479.18±128.36 -6.217 <0.001
免疫球蛋白M IgM/(μg/mL) 114.77±10.86 146.45±18.54 -3.297 0.011
免疫球蛋白G IgG/(μg/mL) 336.74±28.61 383.94±43.54 -2.026 0.077
肿瘤坏死因子-α TNF-α/(pg/mL) 34.06±2.35 46.70±2.88 -7.586 <0.001
脾脏指数 Spleen index/% 0.37±0.04 0.47±0.02 -4.269 0.003

2.5 EPEC感染对小鼠盲肠微生物群落结构的影响

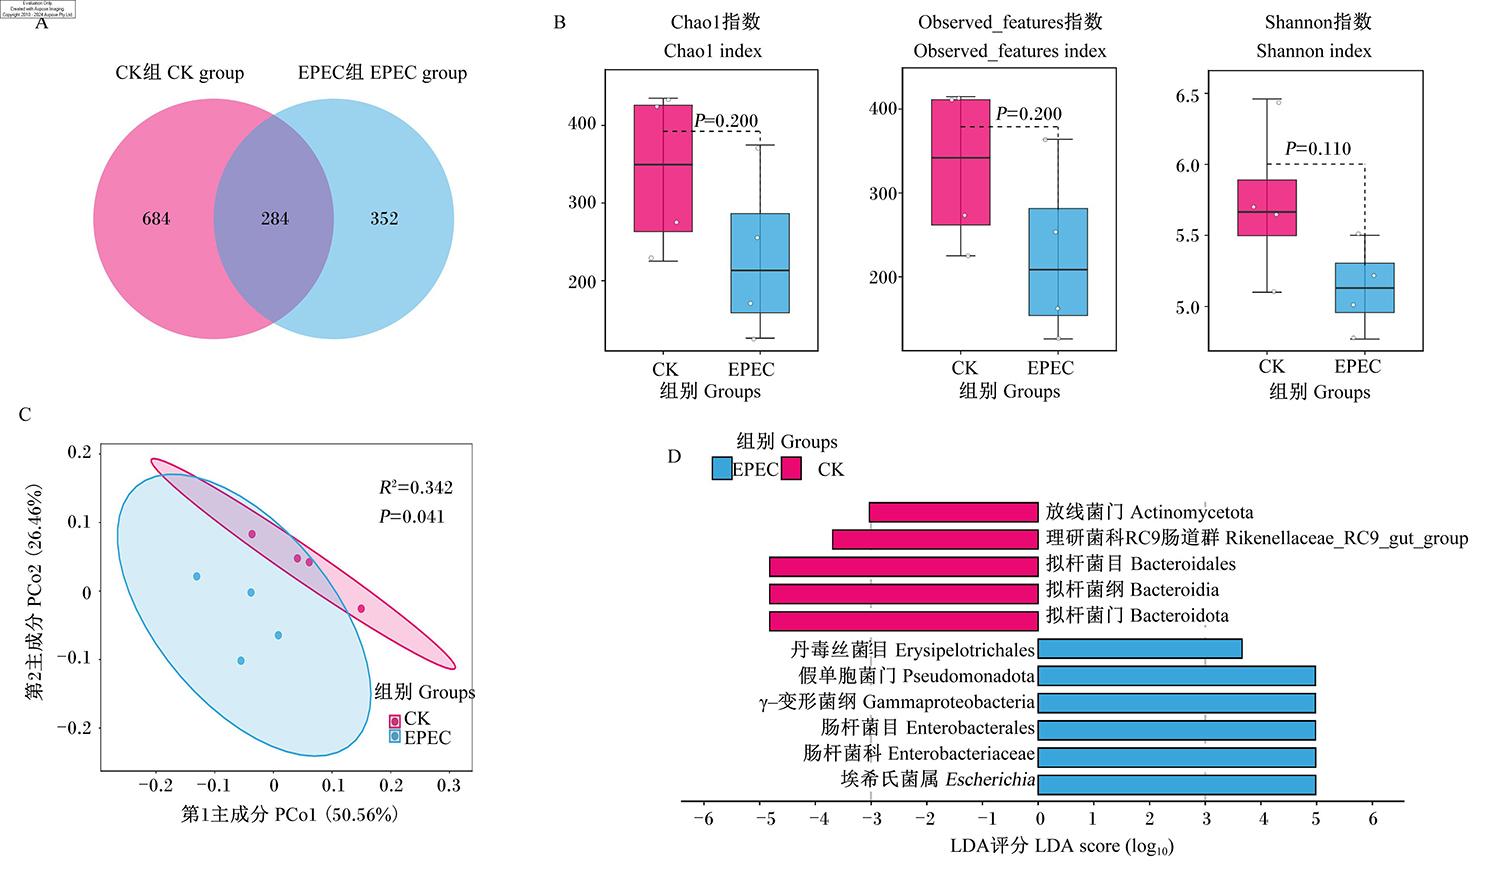
图4-A所示,CK组和EPEC组小鼠盲肠微生物群落共获得1 320个ASVs,其中CK组968个,EPEC组636个;CK组和EPEC组特有ASVs分别为684和352个,共有ASVs为284个。如图4-B所示,EPEC组盲肠微生物群落Chao1指数、Observed_features指数和Shannon指数较CK组均有所下降,但差异不显著(P>0.05)。如图4-C所示,PCoA结果表明,第1主成分贡献率为50.56%,第2主成分贡献率为26.46%;PERMANOVA结果为P=0.041、R2=0.342,提示EPEC组与CK组盲肠微生物群落结构存在显著差异(P<0.05)。如图4-D所示,LEfSe分析结果表明,EPEC组盲肠丹毒丝菌目(Erysipelotrichales)、假单胞菌门(Pseudomonadota)、γ-变形菌纲(Gammaproteobacteria)、肠杆菌目(Enterobacterales)、肠杆菌科(Enterobacteriaceae)和埃希氏菌属(Escherichia)显著富集(P<0.05),CK组盲肠放线菌门(Actinomycetota)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、拟杆菌目(Bacteroidales)、拟杆菌纲(Bacteroidia)和拟杆菌门(Bacteroidota)显著富集(P<0.05)。
图4 EPEC感染对小鼠盲肠微生物群落结构的影响

A:ASVs韦恩图 Venn diagram of ASVs;B:alpha多样性分析 alpha diversity analysis;C:主坐标分析 PCoA;D:LEfSe分析 LEfSe analysis。

Fig.4 Effects of EPEC infection on cecal microbiota structure of mice

2.6 EPEC感染对小鼠盲肠微生物群落功能的影响

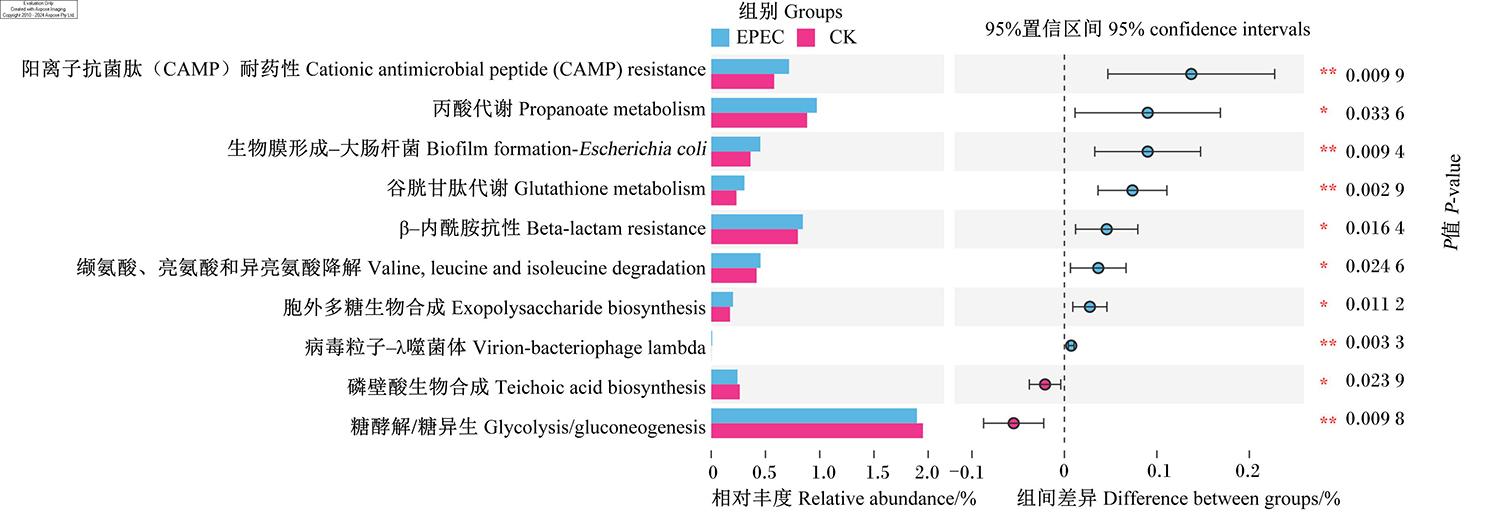
图5所示,与CK组相比,EPEC组小鼠盲肠微生物群落相对丰度显著上调的通路主要包括阳离子抗菌肽(cationic antimicrobial peptide,CAMP)耐药性,丙酸代谢,生物膜形成-大肠杆菌(Escherichia coli),谷胱甘肽代谢,β-内酰胺抗性,缬氨酸、亮氨酸和异亮氨酸降解,以及胞外多糖生物合成(P<0.05),相对丰度显著下调的通路主要包括磷壁酸生物合成和糖酵解/糖异生(P<0.05),提示EPEC感染可能导致小鼠肠道菌群功能发生异常重塑,向耐药性增强、适应性提高及代谢紊乱的方向偏移。
图5 EPEC感染对小鼠盲肠微生物群落功能的影响

*表示P<0.05,**表示P<0.01。

Fig.5 Effects of EPEC infection on cecal microbiota function of mice

* mean P<0.05, and ** mean P<0.01.

2.7 小鼠盲肠差异菌群与表型指标的相关性分析

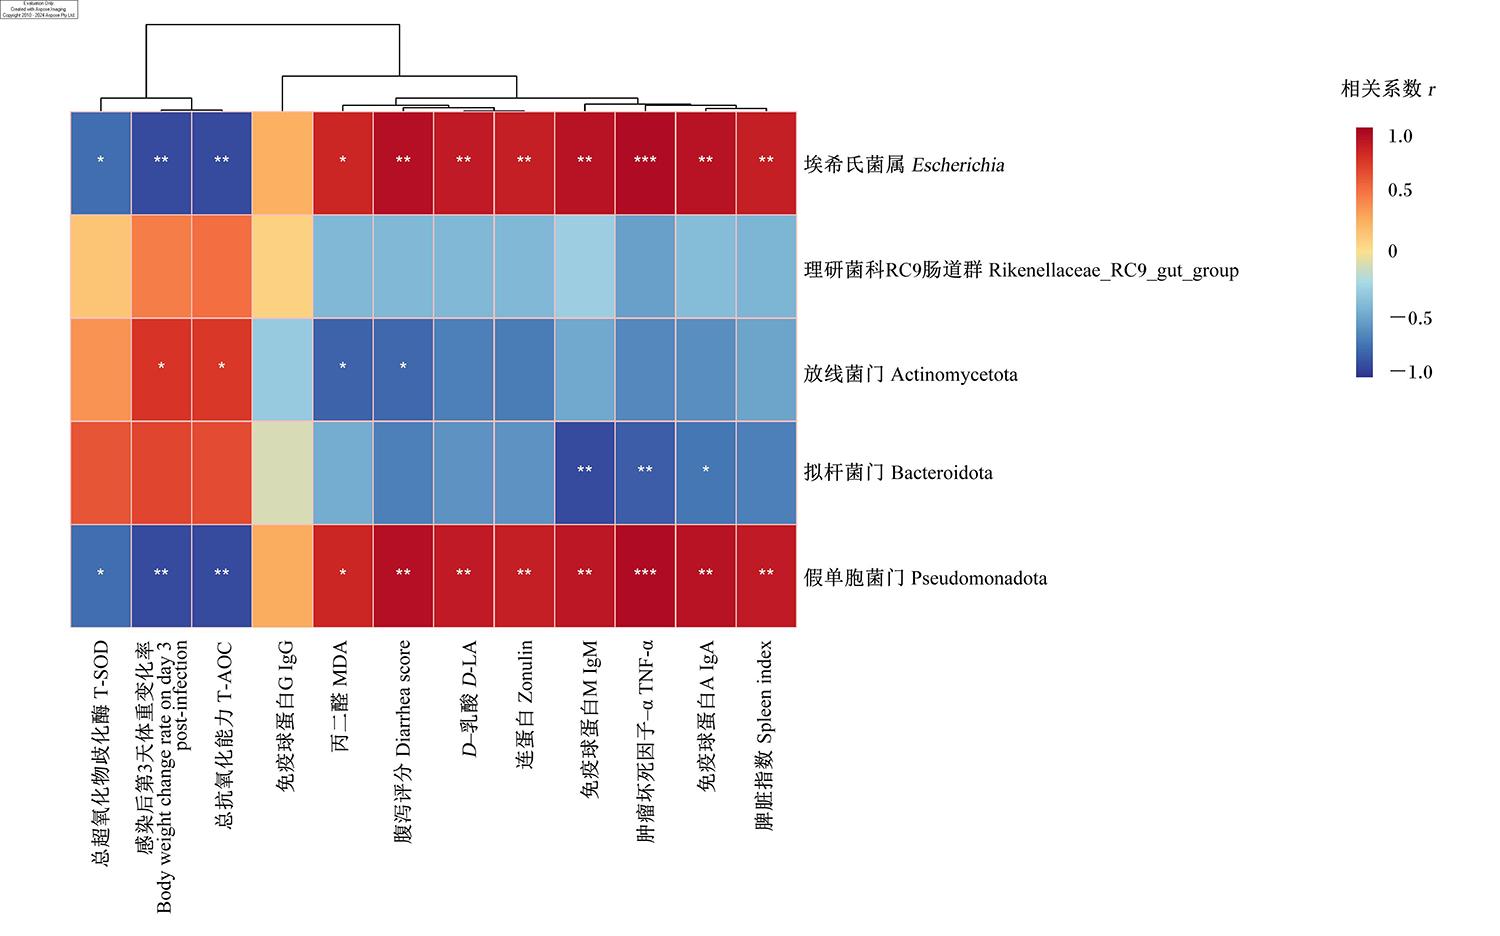
图6所示,小鼠盲肠假单胞菌门和埃希氏菌属相对丰度与血清TNF-α含量均呈极显著正相关(P<0.01),相关系数(r)分别为0.96和0.96;二者与腹泻评分,血清D-LA、连蛋白、IgM和IgA含量,以及脾脏指数均呈极显著正相关(P<0.01),r分别为0.92、0.87、0.84、0.90、0.90、0.87以及0.92、0.87、0.84、0.90、0.91、0.86;二者与血清MDA含量呈显著正相关(P<0.05),r分别为0.81和0.81;二者与感染后第3天体重变化率以及血清T-AOC和T-SOD活性呈显著或极显著负相关(P<0.05或P<0.01),r分别为-0.91、-0.91、-0.77以及-0.91、-0.91、-0.76。盲肠拟杆菌门相对丰度与血清IgM和TNF-α含量呈极显著负相关(P<0.01),r分别为-0.90和-0.84;与血清IgA含量呈显著负相关(P<0.05),r为-0.72。盲肠放线菌门相对丰度与血清MDA含量和腹泻评分呈显著负相关(P<0.05),r分别为-0.81和-0.80;与感染后第3天体重变化率和血清T-AOC呈显著正相关(P<0.05),r分别为0.75和0.73。结果提示,假单胞菌门和埃希氏菌属可能参与促进炎症和肠道损伤,加剧氧化应激;拟杆菌门和放线菌门可能具有抗炎、抗氧化以及维持机体稳态的潜在保护作用。
图6 小鼠盲肠差异菌群与表型指标的相关性热图

*表示显著相关(P<0.05),**(P<0.01)和***(P<0.001)表示极显著相关。

Fig.6 Correlation heatmap of cecal differential microbiota and phenotypic indices of mice

* indicated significant correlation (P<0.05), and ** (P<0.01) and *** (P<0.001) indicated extremely significant correlation.

3 讨论

3.1 EPEC感染对小鼠腹泻评分和体重变化率的影响

腹泻评分和体重变化率是评价腹泻模型的重要指标。经混合抗生素预处理的C57BL/6小鼠,感染福氏志贺氏菌后1~4 d出现急性体重下降及腹泻,体重变化率为5%~15%,且腹泻评分越高,小鼠体重下降幅度越显著,二者呈明显关联[12];Allen等[8]研究发现,ETEC在ICR(CD-1)小鼠肠道定植,但未出现腹泻、体重下降等临床症状。本试验中,小鼠感染EPEC后第1、2和3天,EPEC组腹泻评分从1.54升高至2.14,体重变化率分别为-3.89%、-9.33%和-9.11%,出现中度腹泻及显著的体重下降,并伴有呼吸急促、弓背竖毛及蜷缩等全身症状。由此可知,本试验中,EPEC感染BALB/c小鼠腹泻模型构建成功。

3.2 EPEC感染对小鼠肠道组织形态及通透性的影响

肠道组织形态学分析是评价肠道损伤的最直接证据[18]。本研究中,小鼠十二指肠未观察到病理改变,可能是十二指肠较高的胆汁酸浓度、特定的受体分布抑制了EPEC的定植能力[19];空肠和回肠是EPEC的易感肠段,表现为VH和V/C的极显著降低、上皮细胞坏死和脱落,符合EPEC感染典型的A/E损伤特征。绒毛萎缩和上皮脱落直接导致肠道有效吸收表面积减少,是EPEC感染引起腹泻和体重下降的直接原因。EPEC通过Ⅲ型分泌系统(type Ⅲ secretion system,T3SS)注入效应蛋白,破坏微绒毛结构并导致绒毛顶端成熟上皮细胞坏死脱落[20]。EPEC组空肠和回肠出现A/E损伤,但隐窝结构完整,提示损伤主要局限于分化细胞层;同时,回肠损伤较空肠严重,可能是回肠作为肠道免疫前沿,细菌载量累积及局部炎症反应剧烈所致[21]
肠道通透性是反映肠道屏障功能完整性的重要指标[22]。连蛋白和D-LA是评估肠道屏障功能的关键生物标志物,其在血清中的含量与肠道通透性呈正相关[18]。连蛋白是一种在肠道合成的能够调节肠道通透性的蛋白质;D-LA由肠道细菌发酵生成,当机体遭受应激、感染时会引起肠道屏障功能受损、通透性增加,促使连蛋白、D-LA进入血液[23-24]。何利娜[25]用致病性大肠杆菌O1感染新生犊牛,结果发现提高了犊牛结肠通透性,破坏了其肠道屏障功能。李元元等[23]用ETEC感染小鼠,导致肠道通透性增加,血清D-LA含量显著升高。本试验中,小鼠感染EPEC后,血清连蛋白和D-LA含量极显著升高,表明EPEC感染致使肠道通透性增加,肠腔内细菌及其产物易位风险增高。该结果与空肠、回肠A/E损伤及结肠隐窝损伤并伴有炎性浸润的病理变化相互印证。本试验结果提示,EPEC感染小鼠的肠道损伤具有显著的部位特异性,可能需要兼顾肠道结构修复、抗炎及促进黏膜再生的综合治疗策略。

3.3 EPEC感染对小鼠血清氧化应激指标的影响

氧化应激是机体氧化系统与抗氧化防御系统失衡所导致的病理状态[26]。T-AOC和T-SOD是评价机体抗氧化防御系统功能的主要指标;MDA作为脂质过氧化反应的终产物,其含量可反映机体的氧化应激水平,间接反映组织所受自由基介导的氧化损伤程度[27]。T-AOC、T-SOD等构成了抗氧化防御的第一道防线,在机体全面防御系统中具有重要作用[23]。Yan等[28]研究报道,机体的抗氧化状态是维持肉鸡肠道结构完整性和功能稳定的重要生理基础。Xie等[29]研究发现,大肠杆菌K88感染仔猪诱导肠道氧化损伤,肠道中MDA含量提高,超氧化物歧化酶(SOD)活性和T-AOC降低。魏朝阳等[30]研究发现,ETEC感染小鼠24 h后,血清MDA含量升高,血清SOD活性降低。Jin等[31]研究报道,病原体感染诱发的氧化应激可破坏肠上皮细胞膜完整性,进一步加重肠道病理损伤。本研究中,EPEC感染导致小鼠血清T-AOC和T-SOD活性显著降低,血清MDA含量极显著提高,提示机体氧化损伤加重、抗氧化能力减弱,与前人研究结果一致。

3.4 EPEC感染对小鼠免疫功能的影响

TNF-α作为核心促炎细胞因子,可通过作用于多种靶细胞,启动并放大炎症级联反应[32]。体液免疫在抵抗肠道病原体感染中发挥核心作用,B淋巴细胞在抗原刺激下可分化为浆细胞,进而分泌特异性免疫球蛋白(IgA、IgM和IgG),其中血清IgM含量的迅速升高常被视为急性感染的标志[33]。葛雷[34]研究报道,ETEC感染显著提高仔猪血清IgA和IgG含量,并极显著提高TNF-α的表达水平。本研究中,EPEC感染导致小鼠血清TNF-α、IgA和IgM含量显著升高,提示EPEC感染激活了全身性炎症反应及体液免疫应答。
脾脏是最大的淋巴器官,亦是介导免疫应答、合成并分泌抗体的重要免疫器官[35]。葛雷[34]报道,ETEC感染可引起小鼠脾指数增加;Kawashima等[36]在临床研究中发现克罗恩病患者存在脾脏肿大的现象。本试验中,EPEC感染小鼠的脾脏指数显著升高,这与已有的肠道疾病的研究结果一致。脾脏作为外周免疫应答的关键场所,其增生可能是由于EPEC感染通过激活以脾脏为核心的免疫系统,引发系统性免疫应答,参与宿主抗感染免疫反应及炎症应答的调控过程。

3.5 EPEC感染对小鼠盲肠微生物群落的影响

本试验采用广谱抗生素对小鼠进行预处理,以减少肠道固有菌群对病原菌定植的竞争性抑制[37],在简化菌群背景下探析EPEC感染所诱导的肠道微生态失衡。结果表明,EPEC组小鼠盲肠假单胞菌门、γ-变形菌纲、肠杆菌目和埃希氏菌属等显著富集。EPEC隶属于埃希氏菌属,其在肠道内定植增殖是导致上述系统发育层级类群同步富集的核心原因。动物在健康状态下肠道假单胞菌门相对丰度较低,其异常升高是肠道菌群失调的重要标志,其携带的脂多糖、鞭毛蛋白等可激活肠道炎症,破坏厌氧环境,加剧组织损伤[38]。EPEC感染导致肠道菌群紊乱涉及复杂的宿主-病原菌相互作用[39]。EPEC组盲肠丹毒丝菌目相对丰度显著升高,提示EPEC感染重塑了肠道微环境,可能利于该类机会菌的富集[40]。不过,丹毒丝菌目与EPEC之间是否存在协同作用从而加重疾病表型严重程度,尚待进一步研究。
拟杆菌门参与多糖降解和短链脂肪酸合成,对维持肠道屏障功能至关重要;理研菌科RC9肠道群可维系肠道代谢稳态;放线菌门作为正常小鼠肠道微生物群落的重要组成部分,广泛参与宿主免疫调节过程[41]。本试验中,与CK组相比,EPEC组盲肠放线菌门、拟杆菌门及所属拟杆菌纲、拟杆菌目以及理研菌科RC9肠道群相对丰度显著降低。理研菌科RC9肠道群隶属于拟杆菌门、拟杆菌纲、拟杆菌目,该菌群谱系相对丰度的同步下降,提示EPEC感染可定向抑制肠道核心有益厌氧菌的定植与增殖,导致优势有益菌谱系逐层衰减,进而引发肠道菌群结构的病理性紊乱。
阳离子抗菌肽具有抗菌、抗病毒和抗肿瘤等多种生物学功能,对病原体微生物可进行多靶点破坏[42]。β-内酰胺类抗生素是一大类重要的抗菌药物,包括青霉素类和头孢菌素类等,其抗菌机制是干扰细菌细胞壁的合成[43]。生物膜是指微生物为适应周围环境,黏附于生命或非生命的介质表面,被细菌胞外大分子包裹的细菌群体。与浮游菌相比,生物膜内的细菌对抗生素的耐受性可提高10~1 000倍,是细菌耐药的主要原因之一[44-45]。胞外多糖是覆盖在细胞表面的关键生物大分子,是菌株抵御胃肠道极端环境的物理屏障,更是介导益生菌与宿主免疫系统、肠道黏膜相互作用的核心效应因子,具有抗氧化活性,并可调控生物膜的形成[46]。本试验中,EPEC组小鼠盲肠微生物群落阳离子抗菌肽耐药性、β-内酰胺抗性、生物膜形成-大肠杆菌及胞外多糖生物合成通路的相对丰度显著上调,同时EPEC隶属的埃希氏菌属相对丰度显著升高,提示EPEC可能通过增强对宿主免疫防御及外源性抗菌物质的抵抗能力,促进自身定植。此外,EPEC组盲肠微生物群落磷壁酸生物合成通路的相对丰度显著下调,提示有益革兰氏阳性菌相对丰度下降,肠道免疫防御减弱[47],该发现与EPEC组放线菌门相对丰度显著下调的结论相互印证。谷胱甘肽是维持细胞内氧化还原状态稳态的主要抗氧化剂,本试验中,EPEC组盲肠微生物群落谷胱甘肽代谢通路的相对丰度显著上调,提示机体处于氧化应激状态,进一步印证了EPEC感染导致肠道氧化损伤。同时,EPEC组丙酸代谢、支链氨基酸降解通路的相对丰度同步显著上调,糖酵解/糖异生通路的相对丰度显著下调,提示EPEC感染导致肠道菌群能量代谢紊乱,而具体的机制有待进一步研究。

3.6 小鼠盲肠差异菌群与表型指标的相关性分析

本研究发现,小鼠盲肠假单胞菌门和埃希氏菌属相对丰度与腹泻评分,血清TNF-α、D-LA、连蛋白、IgM和IgA含量,以及脾脏指数呈极显著正相关;与血清MDA含量呈显著正相关;而与感染后第3天体重变化率以及血清T-AOC和T-SOD活性呈显著负相关,这提示EPEC诱导的肠道菌群失衡与宿主全身性免疫炎症激活、肠道屏障损伤及氧化应激相关。假单胞菌门为肠道常见的共生条件致病菌,其约80%的成员携带编码T3SS的基因簇[48]。该系统可向宿主细胞递送效应蛋白,通过干扰核因子-κB(nuclear factor,NF-κB)等关键炎症信号通路,调控促炎细胞因子的分泌,从而加剧局部炎症反应。以EPEC为代表的埃希氏菌属,依靠其毒力岛编码的T3SS及多种效应子,破坏肠上皮细胞紧密连接结构,导致连蛋白表达异常及D-LA入血,致使肠道通透性升高[49]
本研究中,小鼠盲肠拟杆菌门相对丰度与血清IgM和TNF-α含量呈极显著负相关,与血清IgA含量呈显著负相关。已有研究报道,拟杆菌门来源的丝氨酸/甘氨酸(serine/glycine,S/G)脂质可作为Toll样受体(TLR)2配体进入循环系统,上调脾脏单核细胞TLR/NF-κB信号通路负调控因子的转录,从而抑制机体过渡促炎反应[50]。本研究中,小鼠盲肠拟杆菌门相对丰度的下降可能削弱这种免疫调节作用,从而增强单核细胞促炎反应,而外源补充S/G脂质在试验模型中具有重建机体免疫稳态的潜力[50]。小鼠盲肠放线菌门相对丰度与血清MDA和腹泻评分呈显著负相关,而与感染后第3天体重变化率和血清T-AOC呈显著正相关。放线菌门在肠道菌群中占比相对较低,但仍是维持肠道微生态稳态的关键有益菌群。肠道屏障结构损伤常伴随氧化应激,菌群失衡可诱发活性氧大量蓄积,进而加重加机体氧化损伤[51]。因此,靶向调控肠道菌群结构,或可成为防控EPEC感染、缓解肠道损伤的潜在辅助干预策略。

4 结论

综上所述,本试验成功建立了EPEC感染BALB/c小鼠腹泻模型,复现了腹泻、肠道A/E损伤等关键特征;并采用腹泻评分、体重变化率、肠道组织病理损伤、肠道通透性、炎症因子和氧化应激等指标对其进行评价;同时解析了EPEC感染小鼠的特征肠道菌群与代谢通路,可为EPEC致病机制研究和防控产品评价提供有效动物模型和数据参考。
[1]
OH J Y, KANG M S, AN B K, et al. Prevalence and characteristics of intimin-producing Escherichia coli strains isolated from healthy chickens in Korea[J]. Poultry Science, 2012, 91(10):2438-2443.

[2]
MESHREF A M E, ELDSOUKEY I E, ALOUFFI A S, et al. Molecular analysis of antimicrobial resistance among Enterobacteriaceae isolated from diarrhoeic calves in Egypt[J]. Animals, 2021, 11(6):1712.

[3]
MULOI D M, WEE B A, MCCLEAN D M H, et al. Population genomics of Escherichia coli in livestock-keeping households across a rapidly developing urban landscape[J]. Nature Microbiology, 2022, 7(4):581-589.

[4]
SOBHY N M, YOUSEF S G A, ABOUBAKR H A, et al. Virulence factors and antibiograms of Escherichia coli isolated from diarrheic calves of Egyptian cattle and water buffaloes[J]. PLoS One, 2020, 15(5):e232890.

[5]
ELDESOUKEY I E, ELMONIR W, ALOUFFI A, et al. Multidrug-resistant enteropathogenic Escherichia coli isolated from diarrhoeic calves,milk,and workers in dairy farms:a potential public health risk[J]. Antibiotics, 2022, 11(8):999.

[6]
DANDACHI I, CHABOU S, DAOUD Z, et al. Prevalence and emergence of extended-spectrum cephalosporin-,carbapenem- and colistin-resistant gram negative bacteria of animal origin in the Mediterranean basin[J]. Frontiers in Microbiology, 2018, 9:2299.

[7]
JORDAN S, FRANKEL G, MISHRA V. Citrobacter rodentium[J]. Trends in Microbiology, 2025, 33(10):1132-1133.

[8]
ALLEN K P, RANDOLPH M M, FLECKENSTEIN J M. Importance of heat labile enterotoxin in colonization of the adult mouse small intestine by human enterotoxigenic Escherichia coli strains[J]. Infection and Immunity, 2006, 74(2):869-875.

[9]
DUPONT A, SOMMER F, ZHANG K Y, et al. Age-dependent susceptibility to enteropathogenic Escherichia coli (EPEC) infection in mice[J]. PLoS Pathogens, 2016, 12(5):e1005616.

[10]
BOLICK D T, MEDEIROS P H Q S, LEDWABA S E, et al. Critical role of zinc in a new murine model of enterotoxigenic Escherichia coli diarrhea[J]. Infection and Immunity, 2018, 86(7):e00183-18.

[11]
GIALLOUROU N, MEDLOCK G L, BOLICK D T, et al. A novel mouse model of Campylobacter jejuni enteropathy and diarrhea[J]. PLoS Pathogens, 2018, 14(3):e1007083.

[12]
MEDEIROS P H Q S, LEDWABA S E, BOLICK D T, et al. A murine model of diarrhea,growth impairment and metabolic disturbances with Shigella flexneri infection and the role of zinc deficiency[J]. Gut Microbes, 2019, 10(5):615-630.

[13]
LEDWABA S E, COSTA D V S, BOLICK D T, et al. Enteropathogenic Escherichia coli infection induces diarrhea,intestinal damage,metabolic alterations,and increased intestinal permeability in a murine model[J]. Frontiers in Cellular and Infection Microbiology, 2020, 10:595266.

[14]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 实验动物福利伦理审查指南:GB/T 35892-2018[S]. 北京: 中国标准出版社, 2018.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China,Standardization Administration of China. Laboratory animal-guideline for ethical review of animal welfare:GB/T 35892-2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[15]
KURITA A, KADO S, KANEDA N, et al. Modified irinotecan hydrochloride (CPT-11) administration schedule improves induction of delayed-onset diarrhea in rats[J]. Cancer Chemotherapy and Pharmacology, 2000, 46(3):211-220.

[16]
LIMA-JÚNIOR R C P, FIGUEIREDO A A, FREITAS H C, et al. Involvement of nitric oxide on the pathogenesis of irinotecan-induced intestinal mucositis:role of cytokines on inducible nitric oxide synthase activation[J]. Cancer Chemotherapy and Pharmacology, 2012, 69(4):931-942.

[17]
SEGATA N, IZARD J, WALDRON L, et al. Metagenomic biomarker discovery and explanation[J]. Genome Biology, 2011, 12(6):R60.

[18]
王栋, 何炎峻, 柳可欣, 等. 腐殖酸钠对肠产毒素性大肠杆菌K88感染小鼠肠道损伤的保护作用[J]. 动物营养学报, 2022, 34(6):3991-4002.

WANG D, HE Y J, LIU K X, et al. Protective effects of sodium humate on intestinal damage in mice infected with enterotoxigenic Escherichia coli K88[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3991-4002. (in Chinese)

[19]
COLLINS S L, STINE J G, BISANZ J E, et al. Bile acids and the gut microbiota:metabolic interactions and impacts on disease[J]. Nature Reviews Microbiology, 2023, 21(4):236-247.

[20]
FRANKEL G, PHILLIPS A D, ROSENSHINE I, et al. Enteropathogenic and enterohaemorrhagic Escherichia coli:more subversive elements[J]. Molecular Microbiology, 1998, 30(5):911-921.

[21]
NAGASHI T, WATABE T, KOTAKE K, et al. Immunoglobulin a specific deficiency induces spontaneous inflammation specifically in the ileum[J]. Gut, 2022, 71(3):487-496.

[22]
USUDA H, OKAMOTO T, WADA K. Leaky gut:effect of dietary fiber and fats on microbiome and intestinal barrier[J]. International Journal of Molecular Sciences, 2021, 22(14):7613.

[23]
李元元, 梁伟, 陈龙, 等. 牛源罗伊氏乳杆菌对产肠毒素大肠杆菌攻毒小鼠生长性能、免疫性能、抗氧化能力及肠道健康的影响[J]. 动物营养学报, 2024, 36(10):6768-6779.

LI Y Y, LIANG W, CHEN L, et al. Effects of Lactobacillus reuteri from cattle on growth performance,immune performance,antioxidant capacity and intestinal health of mice challenged with enterotoxigenic Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6768-6779. (in Chinese)

[24]
王树玲, 赵胜兵, 方军, 等. 应激及肠道屏障功能障碍在炎症性肠病中的作用[J]. 世界华人消化杂志, 2016, 24(21):3248-3254.

WANG S L, ZHAO S B, FANG J, et al. Role of stress and intestinal barrier dysfunction in inflammatory bowel disease[J]. World Chinese Journal of Digestology, 2016, 24(21):3248-3254. (in Chinese)

[25]
何利娜. 致病性E. coli O1对新生犊牛肠道菌群、机体免疫及代谢的影响机制[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2023.

HE L N. Effect mechanism of pathogenic E.coli O1 on intestinal flora,immunity and metabolism of newborn calves[D]. Ph.D. Thesis. Hohhot: Inner Mongolia Agricultural University, 2023. (in Chinese)

[26]
王栋. 腐殖酸钠对大肠杆菌致肠道损伤的保护作用及对犊牛腹泻的防控研究[D]. 博士学位论文. 哈尔滨: 东北农业大学, 2022.

WANG D. Protective effect of sodium humate on intestinal injury induced by Escherichia coli and study on the prevention and control of diarrhea calves[D]. Ph.D.Thesis. Harbin:Northeast Agricultural University, 2022. (in Chinese)

[27]
HO E, KARIMI GALOUGAHI K, LIU C C, et al. Biological markers of oxidative stress:applications to cardiovascular research and practice[J]. Redox Biology, 2013, 1(1):483-491.

[28]
YAN R, HUI A P, KANG Y R, et al. Effects of palygorskite composites on growth performance and antioxidant status in broiler chickens[J]. Poultry Science, 2019, 98(7):2781-2789.

[29]
XIE W C, SONG L Y, WANG X Y, et al. A bovine lactoferrin lactoferrampin encoding Lactobacillus reuteri CO21 regulates the intestinal mucosal immunity and enhances the protection of piglets against enterotoxigenic Escherichia coli K88 challenge[J]. Gut Microbes, 2021, 13(1):1956281.

[30]
魏朝阳, 尚智援, 李春玲, 等. 致病性大肠杆菌感染小鼠氧化损伤模型的建立及其分子机制研究[J]. 动物营养学报, 2022, 34(12):8108-8119.

WEI Z Y, SHANG Z Y, LI C L, et al. Establishment and molecular mechanism of oxidative damage model in mice infected with pathogenic Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):8108-8119. (in Chinese)

[31]
JIN S S, XU H X, YANG C B, et al. Regulation of oxidative stress in the intestine of piglets after enterotoxigenic Escherichia coli (ETEC) infection[J]. Biochimica et Biophysica Acta:Molecular Cell Research, 2024, 1871(5):119711.

[32]
吴悦, 王怡梦, 王萌萌, 等. 致病性大肠杆菌感染小鼠肠炎模型的建立及其分子机制研究[J]. 动物营养学报, 2021, 33(10):5817-5826.

WU Y, WANG Y M, WANG M M, et al. Establishment of enteritis model in mice infected with enterotoxigenic Escherichia coli and its molecular mechanism[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5817-5826. (in Chinese)

[33]
周光炎. 免疫学原理[M]. 4版. 北京: 科学出版社, 2018.

ZHOU G Y. Principles of immunology[M]. 4th ed. Beijing: Science Press, 2018. (in Chinese)

[34]
葛雷. 低剂量DON对动物感染ETEC的影响与机制及相关生物降解菌的分离与干预作用研究[D]. 博士学位论文. 南京: 南京农业大学, 2022.

GE L. Effects and mechanism of low-dose deoxynivalenol on ETEC infection in animals and isolation and intervention effect of related bacteria with biological detoxification function[D]. Ph.D. Thesis. Nanjing: Nanjing Agricultural University, 2022. (in Chinese)

[35]
GAO Q R, TIAN W Y, YANG H B, et al. Shen-Ling-Bai-Zhu-San alleviates the imbalance of intestinal homeostasis in dextran sodium sulfate-induced colitis mice by regulating gut microbiota and inhibiting the NLRP3 inflammasome activation[J]. Journal of Ethnopharmacology, 2024, 319(Pt 1):117136.

[36]
KAWASHIMA K, ONIZAWA M, FUJIWARA T, et al. Evaluation of the relationship between the spleen volume and the disease activity in ulcerative colitis and Crohn disease[J]. Medicine, 2022, 101(1):e28515.

[37]
亓照耀, 刘金存, 许源慧, 等. 两种给药途径对联合抗生素建立伪无菌大鼠模型比较[J]. 中国微生态学杂志, 2023, 35(10):1123-1129.

QI Z Y, LIU J C, XU Y H, et al. Comparison between two methods of administration in establishing pseudaseptic rat model with combined antibiotics[J]. Chinese Journal of Microecology, 2023, 35(10):1123-1129. (in Chinese)

[38]
郭仕辉, 余永涛, 万佳宏, 等. 变形菌门与哺乳动物结肠肠道菌群失调相关研究进展[J]. 中国微生态学杂志, 2022, 34(4):479-484.

GUO S H, YU Y T, WAN J H, et al. Progress in research on the relationship between Proteobacteria and the imbalance of mammalian colonic intestinal flora[J]. Chinese Journal of Microecology, 2022, 34(4):479-484. (in Chinese)

[39]
KAUR P, DUDEJA P K. Pathophysiology of enteropathogenic Escherichia coli induced diarrhea[J]. Newborn, 2023, 2(1):102-113.

[40]
MANCABELLI L, MILANI C, LUGLI G A, et al. Identification of universal gut microbial biomarkers of common human intestinal diseases by Meta analysis[J]. FEMS Microbiology Ecology, 2017, 93(12):fix153.

[41]
DU R L, BEI H K, JIA L H, et al. Danggui Buxue Tang restores antibiotic-induced metabolic disorders by remodeling the gut microbiota[J]. Journal of Ethnopharmacology, 2020, 259:112953.

[42]
查向东, 徐康森, 刘兢. 阳离子抗菌肽研究进展[J]. 中国药理学通报, 2003, 19(7):735-740.

ZHA X D, XU K S, LIU J. Research advances in cationic antimicrobial peptides[J]. Chinese Pharmacological Bulletin, 2003, 19(7):735-740. (in Chinese)

[43]
杨宝峰, 陈建国. 药理学[M]. 9版. 北京: 人民卫生出版社, 2018.

YANG B F, CHEN J G. Pharmacology[M]. 9th ed. Beijing: People’s Medical Publishing House, 2018. (in Chinese)

[44]
汪文博, 王冠男, 蔡莎莎. 抗菌肽的抗生物膜机理研究进展[J]. 生物工程学报, 2020, 36(7):1277-1282.

WANG W B, WANG G N, CAI S S. Current progress in antimicrobial peptides against bacterial biofilms[J]. Chinese Journal of Biotechnology, 2020, 36(7):1277-1282. (in Chinese)

[45]
PARRINO B, SCHILLACI D, CARNEVALE I, et al. Synthetic small molecules as anti-biofilm agents in the struggle against antibiotic resistance[J]. European Journal of Medicinal Chemistry, 2019, 161:154-178.

[46]
RAZZAK M A, KIM H, HAQUE M A, et al. The prebiotic and techno-functional potential of microbial exopolysaccharides for human health and food systems[J]. Comprehensive Reviews in Food Science and Food Safety, 2026, 25(2):e70406.

[47]
张铭书, 夏永军, 艾连中, 等. 益生菌磷壁酸引起的免疫反应研究进展[J]. 食品科学, 2022, 43(9):242-248.

ZHANG M S, XIA Y J, AI L Z, et al. A review of studies on immunoregulation induced by probiotic teichoic acid[J]. Food Science, 2022, 43(9):242-248. (in Chinese)

[48]
YOUNG V, DOHAI B, HALDER H, et al. Effector-host interactome map links type Ⅲ secretion systems in healthy gut microbiomes to immune modulation[J]. Nature Microbiology, 2026, 11(2):442-460.

[49]
PILAPITIYA A U, HOR L, PAN J, et al. The crystal structure of the toxin EspC from enteropathogenic Escherichia coli reveals the mechanism that governs host cell entry and cytotoxicity[J]. Gut Microbes, 2025, 17(1):2483777.

[50]
MIHORI S, NICHOLS F, PROVATAS A, et al. Microbiome derived bacterial lipids regulate gene expression of proinflammatory pathway inhibitors in systemic monocytes[J]. Frontiers in Immunology, 2024, 15:1415565.

[51]
MOSTAFAVI ABDOLMALEKY H, ZHOU J R. Gut microbiota dysbiosis,oxidative stress,inflammation,and epigenetic alterations in metabolic diseases[J]. Antioxidants, 2024, 13(8):985.

文章导航

/