研究论文

植物乳杆菌cqf-43胞外多糖对鼠伤寒沙门氏菌感染小鼠肠道损伤的预防作用

  • 韩凯 , 1 ,
  • 母新杨 1 ,
  • 钟晓霞 1, 2 ,
  • 刘志云 1, 2 ,
  • 黄金秀 1, 2 ,
  • 周晓容 1, 2 ,
  • 官小凤 , 1, 2, *
展开
  • 1 重庆市畜牧科学院, 重庆 402460
  • 2 国家生猪技术创新中心, 重庆 402460
*官小凤,助理研究员,E-mail:

韩 凯(1997—),女,山东济南人,硕士,从事非常规饲料资源开发研究。E-mail:

Office editor: 田艳明

收稿日期: 2025-12-19

  网络出版日期: 2026-08-13

基金资助

国家生猪技术创新中心先导项目(NCTIP-XD/B04)

Preventive Effects of Exopolysaccharides from Lactobacillus plantarum cqf-43 on Intestinal Injury in Mice Infected with Salmonella Typhimurium

  • HAN Kai , 1 ,
  • MU Xinyang 1 ,
  • ZHONG Xiaoxia 1, 2 ,
  • LIU Zhiyun 1, 2 ,
  • HUANG Jinxiu 1, 2 ,
  • ZHOU Xiaorong 1, 2 ,
  • GUAN Xiaofeng , 1, 2, *
Expand
  • 1 Chongqing Academy of Animal Sciences, Chongqing 402460, China
  • 2 National Center of Technology Innovation for Pigs, Chongqing 402460, China
*assistant professor, E-mail:

Received date: 2025-12-19

  Online published: 2026-08-13

摘要

本试验旨在探究植物乳杆菌cqf-43胞外多糖(EPS43)对鼠伤寒沙门氏菌(S. Tm)感染小鼠肠道损伤的预防作用。适应性饲养7 d后,选取体重约为23 g的健康小鼠30只,随机分为3组(n=10),分别为对照组、模型组和预防组。试验期17 d,在试验第1~14天,对照组和模型组小鼠每日灌胃0.2 mL无菌水,预防组小鼠每日灌胃0.2 mL浓度为0.02 g/mL的EPS43溶液;试验第15天,对照组小鼠灌胃0.2 mL无菌生理盐水,模型组和预防组小鼠灌胃0.2 mL活菌数为2.5×10¹⁰ CFU/mL的S. Tm菌液。结果表明:1)模型组小鼠在感染S. Tm后24(P<0.05)和48 h(P<0.01)的体重增长率分别较对照组显著和极显著降低,预防组小鼠48 h的体重增长率较模型组极显著提高(P<0.01)。2)与对照组相比,模型组小鼠的脾脏粒细胞弥散性浸润并多处出现坏死性细胞碎片;与模型组相比,预防组小鼠的脾脏组织无明显异常。3)与对照组相比,模型组小鼠回肠肿瘤坏死因子-α(TNF-α)mRNA相对表达量极显著提高(P<0.01);与模型组相比,预防组小鼠回肠TNF-α mRNA相对表达量显著降低(P<0.05)。4)与对照组相比,模型组小鼠回肠闭合蛋白(Occludin)(P<0.05)和密封蛋白-1(Claudin-1)(P<0.01)mRNA相对表达量分别显著和极显著降低;与模型组相比,预防组小鼠回肠Claudin-1 mRNA相对表达量显著提高(P<0.05)。5)与对照组相比,模型组小鼠回肠核苷酸结合寡聚化结构域样受体蛋白3(NLRP3)表达极显著提高(P<0.01),预防组回肠NLRP3表达显著提高(P<0.05);与模型组相比,预防组小鼠回肠NLRP3表达显著降低(P<0.05)。综上所述,EPS43可以通过调控小鼠回肠炎症因子、紧密连接蛋白和NLRP3的表达来缓解S. Tm引起的肠道损伤,从而减轻小鼠的脾脏损伤和体重损失。

本文引用格式

韩凯 , 母新杨 , 钟晓霞 , 刘志云 , 黄金秀 , 周晓容 , 官小凤 . 植物乳杆菌cqf-43胞外多糖对鼠伤寒沙门氏菌感染小鼠肠道损伤的预防作用[J]. 动物营养学报, 2026 , 38(8) : 6218 -6229 . DOI: 10.12418/CJAN2026.497

Abstract

This study aimed to investigate the preventive effects of exopolysaccharides from Lactobacillus plantarum cqf-43 (EPS43) on intestinal injury in mice infected with Salmonella Typhimurium (S. Tm). Following a 7-day acclimation period, 30 healthy mice with an average body weight of approximately 23 g were selected and randomly divided into three groups (n=10), which were the control group, model group and prevention group, respectively. The experiment lasted for 17 days. From days 1 to 14, the control and model groups received a daily oral gavage of 0.2 mL sterile water, while the prevention group received 0.2 mL of 0.02 g/mL EPS43 solution. On day 15, the control group was gavaged with 0.2 mL sterile saline, whereas the model and prevention groups were gavaged with 0.2 mL of 2.5×10¹⁰ CFU/mL S. Tm suspension. The results showed as follows: 1) compared with the control group, the body weight gain rate of mice in the model group was significantly decreased at 24 h (P<0.05) and extremely significantly decreased at 48 h (P<0.01) after infection with S. Tm. At 48 h, the body weight gain rate in the prevention group was extremely significantly increased compared with the model group (P<0.01). 2) Compared with the control group, the granulocytes in spleen of mice in the model group were diffusely infiltrated and multiple necrotic cellular debris were observed; compared with the model group, there were no obvious abnormalities in spleen tissue of mice in the prevention group. 3) Compared with the control group, the tumor necrosis factor-α (TNF-α) mRNA relative expression level in ileum of mice in the model group was extremely significantly increased (P<0.01). Compared with the model group, the TNF-α) mRNA relative expression level in ileum in the prevention group was significantly decreased (P<0.05). 4) Compared with the control group, the mRNA relative expression levels of Occludin (P<0.05) and Claudin-1 (P<0.01) in ileum of mice in the model group were significantly and extremely significantly downregulated, respectively. Compared with the model group, the Claudin-1 relative expression level in ileum in the prevention group was significantly increased (P<0.05). 5) Compared with the control group, the nucleotide-binding oligomerization domain-like receptor protein 3 (NLRP3) expression in ileum of mice in the model group was extremely significantly increased (P<0.01), and that in the prevention group was also significantly increased (P<0.05). Compared with the model group, the NLRP3 expression in ileum in the prevention group was significantly decreased (P<0.05). In conclusion, EPS43 can alleviate intestinal injury induced by S. Tm by modulating the expression of inflammatory factors, tight junction proteins, and NLRP3 in the ileum of mice, thereby reducing the splenic damage and body weight loss.

鼠伤寒沙门氏菌(Salmonella Typhimurium,S. Tm)是一种全球性分布的食源性致病菌,具有显著的人畜共患特征,能够在猪、牛、鸡等宿主肠道中持续定植,并通过污染的食物和水源实现跨物种传播,在多宿主体内引发肠道炎症、腹泻、败血症、发热和脑膜炎等病症,对畜禽养殖业和公共卫生安全构成持续性威胁[1-2]。目前,S. Tm的防治以抗生素为主,但抗生素的不合理使用甚至滥用导致沙门氏菌耐药,且耐药基因移动遗传元件的迅速传播可使沙门氏菌获得大肠杆菌的耐药基因[2-3],这提高了沙门氏菌的耐药基因数量和耐药性。随着饲料端全面禁抗政策的实施及其对畜禽养殖业带来的生产效能降低、疾病爆发、病死率增加等冲击,寻求能够促进畜禽生长、预防疾病和不易产生耐药性的替抗制剂成为热点[4-5]
多糖类物质对病原菌及其内毒素导致的动物肠道[6-8]和体外细胞(巨噬细胞RAW364.7[9]、人结肠腺癌Caco-2细胞[10])的损伤具有缓解作用已被多项研究证实。乳酸菌胞外多糖是乳酸菌在生长过程中合成并分泌到细胞外的生物聚合物,相比植物类多糖,具有合成周期短、实现量产潜力大[11]的特点,在提升畜禽肠道健康、防御病原菌侵袭等方面备受关注。阮诗慧等[12]研究发现,饲粮添加300 mg/kg罗伊氏乳杆菌胞外多糖可以有效提升断奶仔猪生长性能,改善肠道屏障功能,这为乳酸菌胞外多糖在断奶仔猪上的合理应用提供了基础数据。赵濛等[13]研究发现,干酪乳杆菌WXD30胞外多糖能够缓解大肠杆菌引起的胃肠道黏膜结构损伤,并指出乳酸菌胞外多糖可以作为一种潜在的用于缓解羔羊养殖中由大肠杆菌引起腹泻的微生态试剂。以上研究表明,乳酸菌胞外多糖可以通过改善畜禽肠道屏障功能和减轻肠道炎症反应来提升畜禽的肠道健康水平,但针对致病菌(尤其是沙门氏菌)感染造成的肠道损伤的预防作用和作用机制的报道较少。本实验室前期研究发现,植物乳杆菌cqf-43胞外多糖(EPS43)不仅对健康断奶仔猪的生长性能和免疫水平具有提升作用[14],还可以通过改善肠道形态、增强肠上皮屏障功能及优化菌群结构等显著提升健康小鼠的肠道健康水平[11]。在此基础之上,本研究通过系统评估EPS43对S. Tm感染小鼠体重、脾脏以及肠道健康的影响,解析EPS43对病原菌侵染的预防作用及其机制,为乳酸菌胞外多糖在畜禽养殖业中用于防御病原菌侵袭方面的应用提供参考。

1 材料与方法

1.1 试验材料

植物乳杆菌cqf-43为本实验室分离并保藏的菌株(保藏登记号:GDMCC 62463)。
EPS43:将活化的植物乳杆菌cqf-43按1%的接种量接种到MRS液体培养基(HB0384-1,青岛高科技工业园海博生物技术有限公司)中,37 ℃恒温静置培养30 h后,使用离心机(75007214,Thermo Fisher,美国)在4 ℃、13 320×g条件下离心10 min,取上清液按照1∶4(体积比)的比例加入无水乙醇(分析纯,重庆茂业化学试剂有限公司),4 ℃沉淀24~48 h后以4 ℃、13 320×g条件离心10 min收集沉淀。将沉淀用蒸馏水溶解,按照溶解液5倍的体积加入Sevag试剂[氯仿与正丁醇按照4∶1(体积比)混合],振荡后静置5 min,3 330×g离心10 min,蛋白层会在多糖液与Sevag试剂的分界面析出,除去蛋白层,重复以上步骤,直至无蛋白析出。最后用透析袋(YA1083,北京索莱宝科技有限公司)透析72 h,冷冻干燥得到EPS43。将多糖用无菌蒸馏水溶解,得到EPS43溶液。依据前期试验结果,灌胃用EPS43溶液浓度为0.02 g/mL[11],现配现用。
灌胃用S. Tm:S. Tm菌株来自中国农业科学院上海兽医研究所,活菌数为2.5×10¹⁰ CFU/mL。
试验小鼠:无特定病原体(SPF)级Balb/c小鼠,雄性,7周龄,购于湖南斯莱克景达实验动物有限公司。

1.2 试验设计

小鼠适应性饲养7 d后,从中选取体重约为23 g的健康小鼠30只,随机分为3组(n=10),分别为对照组(Con组)、模型组(S. Tm组)和预防组(EPS43组)。试验期17 d,在试验第1~14天,对照组和模型组小鼠每日灌胃0.2 mL无菌水,预防组小鼠每日灌胃0.2 mL浓度为0.02 g/mL的EPS43溶液;试验第14天21:00对所有小鼠禁食不禁水,并在试验第15天09:00对小鼠进行灌胃,其中对照组小鼠灌胃0.2 mL无菌生理盐水,模型组和预防组小鼠灌胃0.2 mL活菌数为2.5×10¹⁰ CFU/mL的S. Tm菌液,灌胃后禁食禁水3 h。
试验所涉小鼠在重庆市畜牧科学院SPF级小鼠房内进行饲养,试验方案经过重庆市畜牧科学院动物实验伦理委员会批准(批准编号:XKY-20230104)。试验期间,小鼠单笼饲养,鼠房温度为26 ℃,每天光照12 h(09:00—21:00);小鼠自由采食和饮水,饲粮同官小凤等[11]报道。

1.3 样品采集

试验第17天对小鼠进行称重后,每组随机选取8只小鼠进行二氧化碳(CO2)麻醉处死。采集完整脾脏,称重并记录,用于计算脾脏指数;采集脾脏组织,置于4%多聚甲醛溶液进行固定,用于组织病理分析;采集回肠组织,置于4%多聚甲醛溶液进行固定,用于免疫组化分析;采集回肠组织于冻存管,液氮速冻后于-80 ℃密封保存,用于分析细胞因子、紧密连接相关蛋白mRNA相对表达量。

1.4 检测指标

1.4.1 体重增长率

分别于试验第15、16和17天09:00对小鼠进行称重并记录,并以第15天09:00的体重为基础,计算灌胃S. Tm菌液后24和48 h的体重增长率,计算公式如下:

24h体重变化(g/只)=第16天体重(g/只)-第15天体重(g/只);

48h体重变化(g/只)=第17天体重(g/只)-第15天体重(g/只);

体重增长率(%)=100×体重变化(g/只)/第15天体重(g/只)。

1.4.2 脾脏组织病理分析和脾脏指数计算

将固定后的脾脏组织送至北京锴越生物科技有限公司进行包埋、石蜡切片制备和苏木精-伊红染色。采用正置白光拍照显微镜(ECLIPSE Ci-L,Nikon,日本)浏览切片,并分别在20倍和400倍数下详细观察组织切片情况,每张切片提供相应典型视野图片,观察切片中脾脏组织病理炎性变化。小鼠脾脏指数计算公式如下:

脾脏指数(%)=100×脾脏重量(g)/小鼠体重(g)。

1.4.3 回肠细胞因子和紧密连接相关蛋白mRNA相对表达量

取回肠组织0.1 g进行匀浆,采用RNA提取试剂盒(RE205,北京爱普锐晟科技有限公司)并严格按照说明书进行RNA的提取;测定提取RNA浓度后,采用逆转录预混型试剂盒[翌圣生物科技(上海)股份有限公司]将提取的RNA逆转录为cDNA;得到cDNA后采用实时荧光定量PCR(qRT-PCR)法测定细胞因子:白细胞介素-10(IL-10)、白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)mRNA相对表达量;同时测定紧密连接蛋白:闭锁小带蛋白-1(ZO-1)、闭合蛋白(Occludin)和密封蛋白-1(Claudin-1)mRNA相对表达量。引物委托生工生物工程(上海)股份有限公司合成,引物序列见表1。目的基因mRNA相对表达量采用2-ΔΔCt法进行计算,内参基因为甘油醛-3-磷酸脱氢酶(GAPDH)。
表1 qRT-PCR引物序列

Table 1 Primer sequences for qRT-PCR

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession No.
白细胞介素-1β IL-1β F:ACCTTTGACCTGGGCTGTCC
R:TGCCTGCCTGAAGCTCTTGT
XM_006498795.5
白细胞介素-10 IL-10 F:ACTGCTATGCTGCCTGCTCT
R:GACTGGGAAGTGGGTGCAGT
XM_036162094.1
肿瘤坏死因子-α TNF-α F:CTGTAGCCCACGTCGTAGCA
R:AGGTACAACCCATCGGCTGG
NM_013693.3
闭锁小带蛋白-1 ZO-1 F:ACCGAAACCTGTGTATGCTC
R:ATCATTTCCACCAGCTAGTCG
NM_009386.3
闭合蛋白 Occludin F:TACAGGCAGAACTAGACGAC
R:TGATGTGCGATAATTTGCTCT
NM_001360538.1
密封蛋白-1 Claudin-1 F:GCTGATCGCAATCTTTGTGTCC
R:CACTAATGTCGCCAGACCTGA
NM_016674.4
甘油醛-3-磷酸脱氢酶 GAPDH F:TCTGGAAAGCTGTGGCGTGA
R:AGCTCTGGGATGACCTTGCC
NM_001411843.1

1.4.4 回肠免疫组化分析

将固定后的回肠组织送至北京锴越生物科技有限公司进行石蜡切片的制备,经脱蜡至水、抗原修复、血清封闭、抗体孵育、3,3'-二氨基联苯胺(DAB)显色及复染细胞核、脱水封面等后,再对石蜡切面组化荧光结果进行判读,其中阴性细胞无着色,计0分;弱阳性细胞为淡黄色,计1分;中度阳性细胞为棕黄色,计2分;强阳性细胞为棕褐色,计3分。以组织化学评分(histochemistry score,H-score)表示阳性表达情况,组织化学评分=(弱阳性细胞百分比×1)+(中度阳性细胞百分比×2)+(强阳性细胞百分比×3)。髓样分化因子88(myeloid differentiation factor 88,MyD88)、核因子-κB(nuclear factor-κB,NF-κB)、核苷酸结合寡聚化结构域样受体蛋白3(nucleotide-binding oligomerization domain-like receptor protein 3,NLRP3)和Toll样受体4(Toll like receptor 4,TLR4)的抗体购买于武汉赛维尔生物科技有限公司,货号分别为GB111554-100、GB11997-100、GB114320-100和GB11519-100。

1.5 数据统计分析

试验数据使用Excel 2021初步整理后,采用SPSS 22.0软件进行统计分析,组间差异显著性通过单因素方差分析(one-way ANOVA),并采用Tukey法进行多重比较,0.05≤P<0.10表示差异有显著趋势,P<0.05表示差异显著,P<0.01表示差异极显著;采用GraphPad Prism 8进行数据图的绘制,结果用“平均值±标准误”形式表示。

2 结果与分析

2.1 EPS43对S. Tm感染小鼠体重增长率的影响

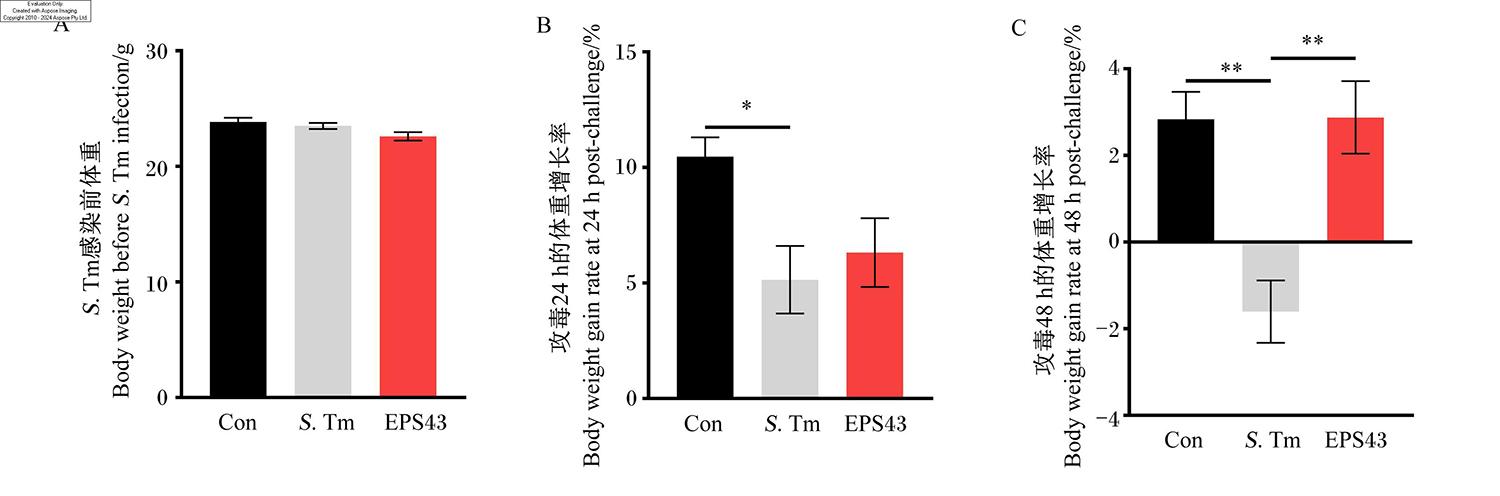
图1所示,在S. Tm感染前(图1-A),3组小鼠体重无显著差异(P>0.05)。S. Tm感染24 h时(图1-B),模型组小鼠体重增长率较对照组显著降低(P<0.05),预防组体重增长率与对照组相比无显著差异(P>0.05)。S. Tm感染48 h时(图1-C),模型组小鼠体重增长率为负,较对照组和预防组极显著降低(P<0.01);而预防组与对照组间体重增长率无显著差异(P>0.05)。
图1 EPS43对S. Tm感染小鼠体重增长率的影响

Con为对照组,S. Tm为模型组,EPS43为预防组;数据柱形连线标注**表示组间差异极显著(P<0.01),*表示组间差异显著(P<0.05)。下图同。

Fig.1 Effects of EPS43 on body weight gain rate in S. Tm-infected mice

Con was control group, S. Tm was model group, and EPS43 was prevention group; the data bars with connecting lines were annotated where ** indicated extremely significant differences between groups (P<0.01), and * indicated significant differences between groups (P<0.05). The same as below.

2.2 EPS43对S. Tm感染小鼠脾脏的影响

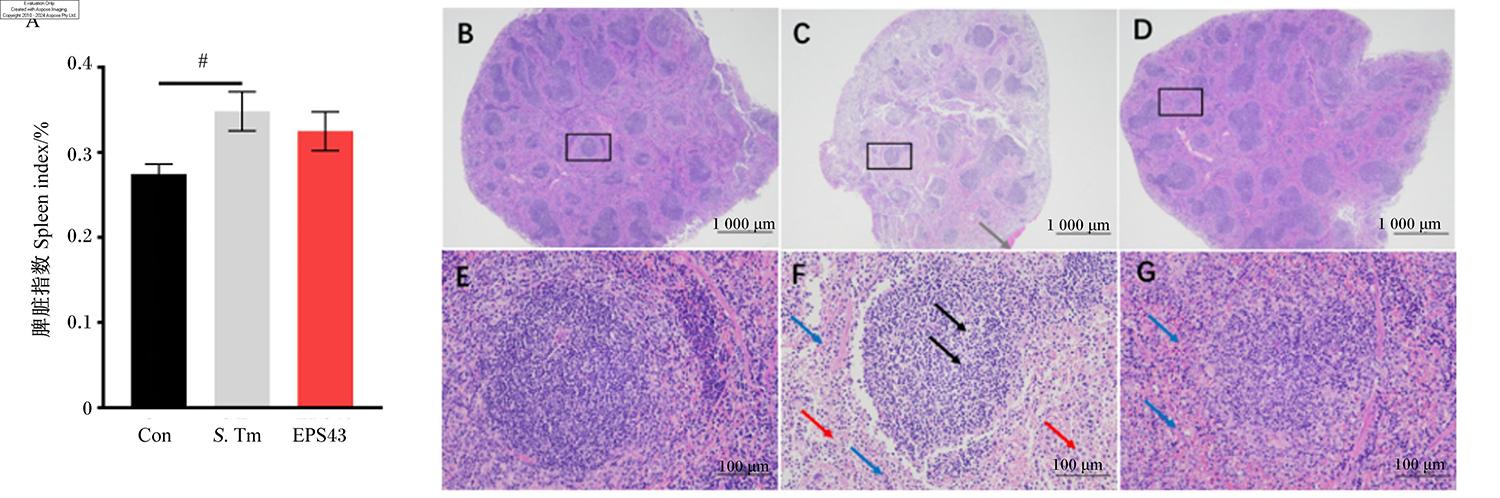
小鼠脾脏指数和脾脏组织病理变化如图2所示,由图2-A可知,模型组小鼠脾脏指数较对照组有提高趋势(P=0.053);预防组脾脏指数介于模型组与对照组之间,且与对照组和模型组均无显著差异(P>0.05)。进一步对小鼠脾脏组织进行病理分析,结果显示模型组小鼠脾脏被膜中无结构的嗜酸性坏死物明显(图2-C);白髓处淋巴细胞排列紊乱,可见多量的坏死性细胞碎片,红髓与白髓分界模糊,红髓结构疏松,亦可见多量的坏死性细胞碎片和多量粒细胞呈弥散性浸润(图2-F)。与模型组相比,预防组小鼠脾脏被膜(图2-D)、白髓以及红髓与白髓分界无明显异常,红髓处可见少量粒细胞浸润(图2-G)。
图2 EPS43对S. Tm感染小鼠脾脏的影响

图A表示脾脏指数;图B、图C和图D分别为对照组、模型组和预防组小鼠脾脏组织20倍视野图,图中灰色箭头标示脾脏组织被膜坏死物;图E、图F和图G分别为图B、图C和图D中黑色方框位置的400倍视野图,图中蓝色箭头标示粒细胞浸润,黑色箭头标示白髓坏死细胞碎片,红色箭头标示红髓坏死细胞碎片。数据柱形连线标注#表示组间差异有显著趋势(0.05≤P<0.10),图6同。

Fig.2 Effects of EPS43 on spleen in S. Tm-infected mice

Panel A showed spleen index. Panels B, C, and D were representative images of splenic tissue in mice at 20× magnification from the control, model, and prevention groups, respectively. The gray arrows indicated necrotic debris on splenic capsule. Panels E, F, and G were higher-magnification views (400×) of the areas outlined by black squares in panels B, C, and D, respectively. The blue arrows denoted granulocyte infiltration, black arrows pointed to necrotic cellular debris in white pulp, and red arrows indicated necrotic cellular debris in red pulp. The data bars with connecting lines were annotated where # indicated significant trend between groups (0.05≤P<0.10), the same as Fig.6.

2.3 EPS43对S. Tm感染小鼠回肠细胞因子mRNA相对表达量的影响

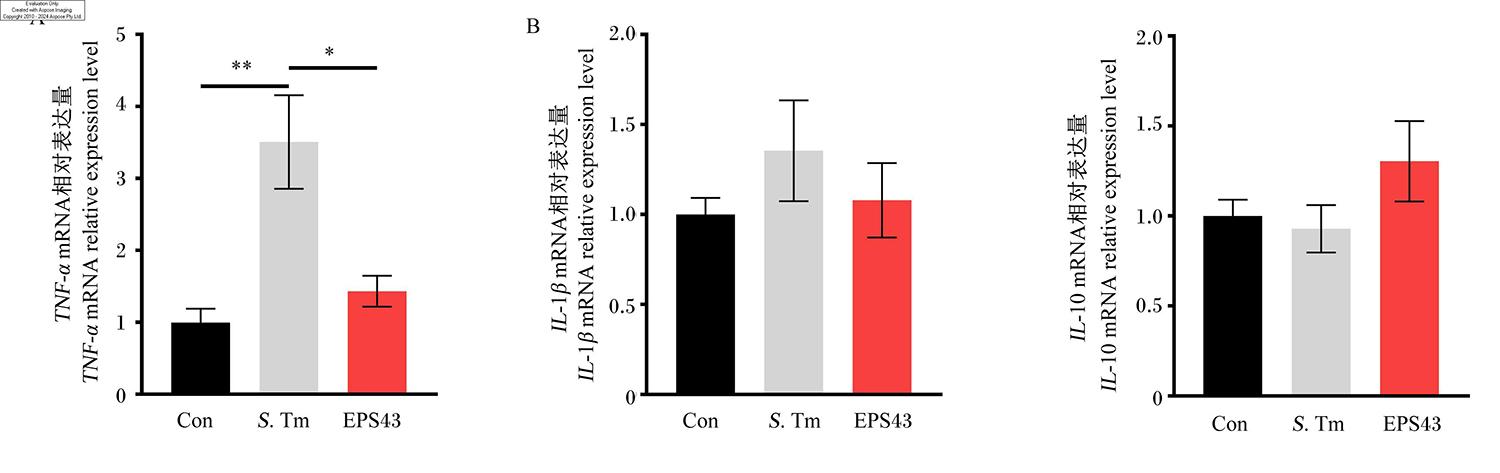
图3所示,与对照组相比,模型组小鼠回肠TNF-α mRNA表达量极显著提高(P<0.01);同时,回肠IL-1β mRNA相对表达量提高,且回肠IL-10 mRNA相对表达量降低,但均无显著差异(P>0.05)。预防组小鼠回肠TNF-α mRNA相对表达量较模型组显著降低(P<0.05),同时回肠TNF-αIL-1βIL-10 mRNA相对表达量与对照组相比无显著差异(P>0.05)。
图3 EPS43对S. Tm感染小鼠回肠细胞因子mRNA相对表达量的影响

Fig.3 Effects of EPS43 on ileal cytokine mRNA relative expression levels in S. Tm-infected mice

2.4 EPS43对S. Tm感染小鼠回肠紧密连接相关蛋白mRNA相对表达量的影响
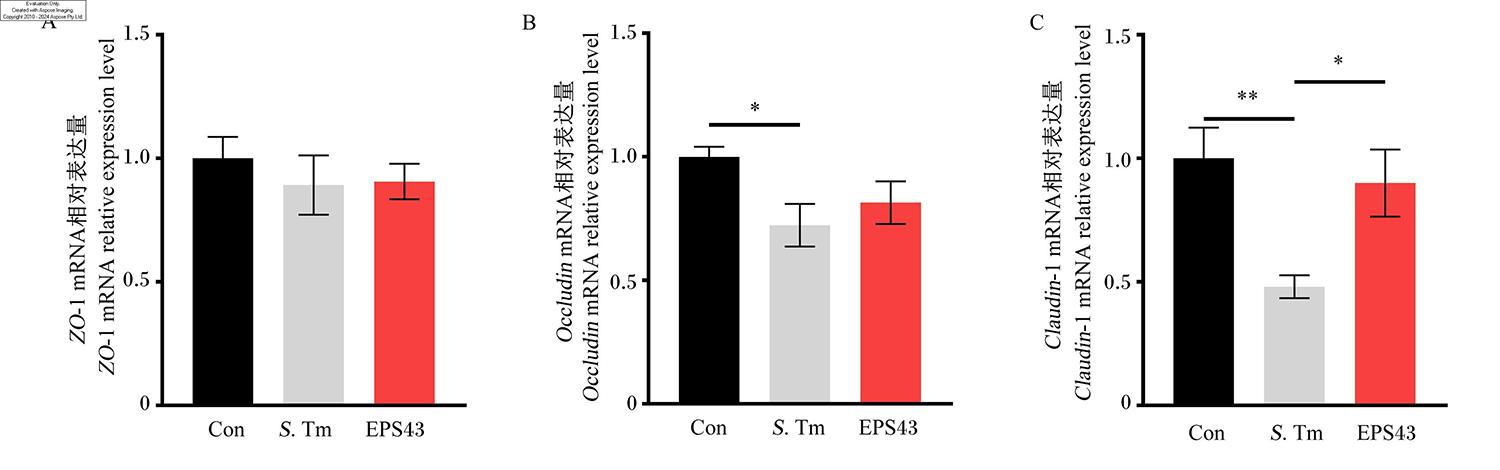
图4所示,与对照组相比,模型组小鼠回肠ZO-1、OccludinClaudin-1 mRNA相对表达量不同程度降低,其中回肠Occludin(P<0.05)和Claudin-1(P<0.01)mRNA相对表达量分别显著和极显著降低。与模型组相比,预防组小鼠回肠Claudin-1 mRNA相对表达量显著提高(P<0.05);回肠Occludin mRNA相对表达量介于对照组与模型组之间,同时与对照组和模型组均无显著差异(P>0.05)。
图4 EPS43对S. Tm感染小鼠回肠紧密连接相关蛋白mRNA相对表达量的影响

Fig.4 Effects of EPS43 on ileal tight junction relative protein mRNA expression levels in S. Tm-infected mice

2.5 EPS43对S. Tm感染小鼠回肠TLR4/MyD88/NF-κB/NLRP3信号通路表达的影响
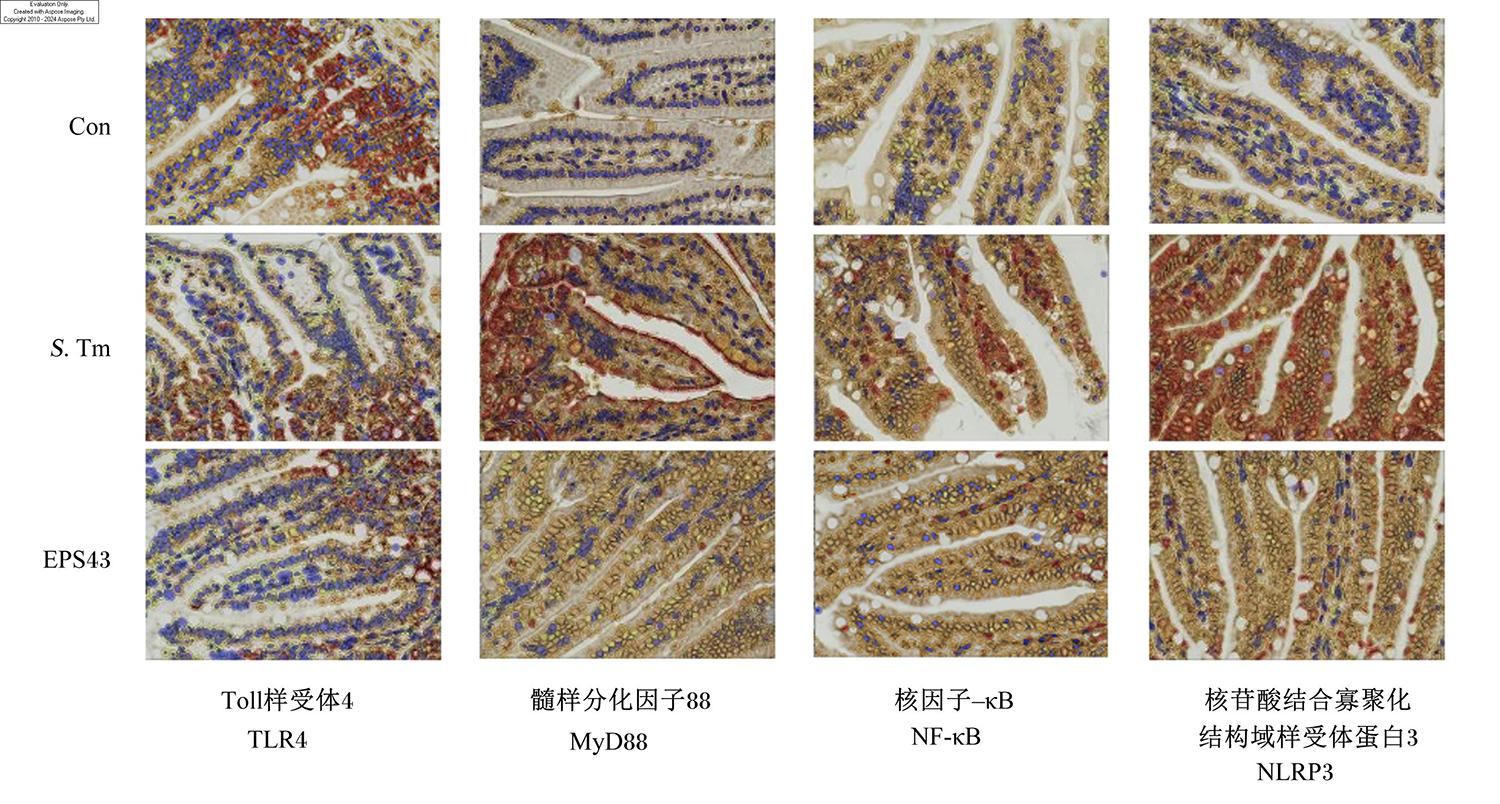
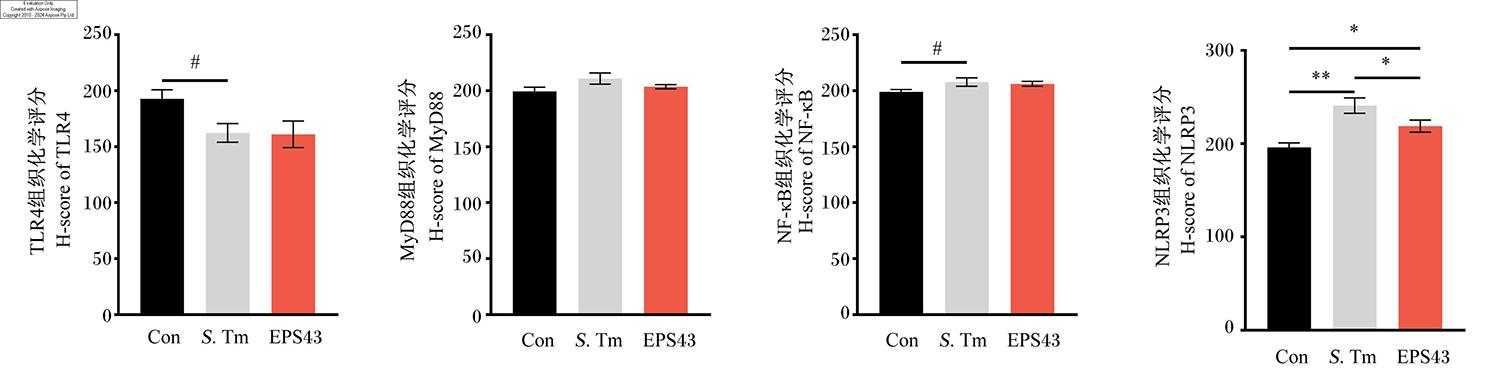
小鼠回肠组织石蜡切片免疫组化荧光结果如图5所示,与对照组相比,模型组和预防组小鼠回肠TLR4强阳性细胞数量减少,回肠MyD88、NF-κB和NLRP3强阳性细胞数量增多。进一步将每张切片内阳性面积比率及其染色强度转化为相应数值,以达到对肠道组织免疫染色阳性深浅和阳性多少2方面进行综合半定量分析的目的,结果如图6所示。与对照组相比,模型组回肠NLRP3组织化学评分极显著提高(P<0.01),回肠NF-κB组织化学评分有升高趋势(P=0.086),回肠TLR4组织化学评分有降低趋势(P=0.069),回肠MyD88组织化学评分有所提高,但未达到显著水平(P>0.05)。与模型组相比,预防组回肠NLRP3组织化学评分显著降低(P<0.05),同时回肠MyD88和NF-κB组织化学评分降低,但未达到显著水平(P>0.05)。此外,预防组回肠NLRP3组织化学评分较对照组显著提高(P<0.05),回肠TLR4、MyD88和NF-κB组织化学评分与对照组相比无显著差异(P>0.05)。
图5 小鼠回肠组织石蜡切片免疫组化荧光视野图

Fig.5 Immunohistochemical fluorescence field view of paraffin sections of ileal tissue in mice (400×)

图6 EPS43对S. Tm感染小鼠回肠TLR4/MyD88/NF-κB/NLRP3信号通路表达的影响

Fig.6 Effects of EPS43 on ileal TLR4/MyD88/NF-κB/NLRP3 signaling pathway expression in S. Tm-infected mice

3 讨论

3.1 EPS43对S. Tm感染小鼠体重的影响

乳酸菌胞外多糖可提高断奶仔猪的消化吸收功能,进而提高其采食量和平均日增重[12]。本研究结果显示,S. Tm感染小鼠48 h内,模型组小鼠体重损失逐渐增大,而预防组小鼠体重损失较模型组降低,且48 h时的体重增长率与对照组相比无显著差异,这与阮诗慧等[12]的研究结果具有一定的相似性;不同的是,上述研究中罗伊氏乳杆菌胞外多糖的受试动物处于健康状态,而EPS43的受试动物为S. Tm感染动物。因此,本研究中模型组动物体重的减轻归结于S. Tm感染造成的肠道屏障功能损伤及其引起的全身性炎症反应,预防组小鼠体重的恢复更多的是EPS43对病原菌感染的防御作用,这与梁浩等[15]的研究结果一致,也可在后文得到证实。由此可见,EPS43对病原菌侵袭及其引发的全身性炎症具有一定的防御作用,进而减轻了S. Tm感染小鼠的体重损失,这提示乳酸菌胞外多糖不仅具备作为饲料添加剂以提高畜禽生长性能的能力,还可作为潜在的替抗制剂在防治家畜病原菌感染方面具有广泛应用前景[16]

3.2 EPS43对S. Tm感染小鼠脾脏的影响

S. Tm经口进入肠道后,依靠黏附素和菌毛黏附于宿主肠黏膜上皮细胞并迅速增殖,可直接通过表达CD18的巨噬细胞和表达CXC趋化因子受体3(CXCR3)的树突状细胞从胃肠道直接进入血液[1,17];还可被巨噬细胞运转到肠系膜淋巴结,继而通过半胱天冬酶(Caspase)-1/8依赖的细胞焦亡途径和受体相互作用蛋白(RIP)1-RIP3依赖的细胞程序性坏死途径刺激巨噬细胞裂解,进而大量进入血液循环和淋巴循环,在脾脏中定植[1,18],引起脾脏肿大和组织病变[4,15]。因此,本研究对小鼠脾脏组织进行病理分析,以侧面分析EPS43对S. Tm感染动物肠黏膜屏障的影响。结果显示,模型组小鼠脾脏有肿大趋势,脾脏组织出现大面积坏死和严重的炎症反应,这说明S. Tm成功进入小鼠胃肠道并透过胃肠道屏障到达脾脏。相比模型组,预防组小鼠脾脏组织无明显病变,且脾脏指数与对照组相比无显著差异,说明EPS43在肠道内对S. Tm透过肠上皮细胞进入脾脏起到了一定的防御作用,进而减轻了脾脏的病变程度,这与干酪乳杆菌WXD30胞外多糖[13]保护大肠杆菌感染羔羊肠黏膜结构的完整性和屎肠球菌WEFA23胞外多糖[19]降低单增李斯特菌在脾脏中的载量并缓解小鼠脾脏肿大的研究结果相似。

3.3 EPS43对S. Tm感染小鼠回肠细胞因子mRNA表达的影响

S. Tm会引发肠上皮细胞的强烈炎症反应,导致TNF-αIL-1β等细胞因子的表达或分泌增加[20-21],而植物乳杆菌后生元可通过降低TNF-α和IL-1β等含量并增加白细胞介素-4(IL-4)和IL-10的分泌来减轻沙门氏菌引起的肠道炎症[22]。本研究结果显示,模型组小鼠回肠TNF-αIL-1β mRNA相对表达量较对照组和预防组提高。IL-1β可诱导肠上皮细胞发生损伤,使得病原菌容易入侵,TNF-α过表达会促进肠上皮细胞凋亡而加重炎症程度[22],这说明S. Tm可通过诱导促炎因子的表达来引起肠道组织的炎症损伤,而EPS43可以通过下调促炎因子的表达来减轻损伤。研究表明,IL-10可以促进肠上皮细胞增殖而加快伤口愈合,并通过诱导多种抗炎分子(白细胞介素-1受体拮抗因子、细胞因子信号传导抑制因子3等)的产生来抑制IL-1β、白细胞介素-6(IL-6)等促炎因子的表达和分泌[23],发挥抗炎作用;IL-10还可通过调控凋亡基因的表达来减少肠黏膜上皮细胞的凋亡,降低肠道炎症程度[23-24]。本研究中,预防组小鼠回肠IL-10 mRNA相对表达量较模型组有所上调,这提示TNF-αIL-1β表达的下调可能与EPS43介导的IL-10表达的上调有关,这与白藜芦醇[25]和翁芩复方[2]通过下调促炎因子(TNF-αIL-6)的表达/含量并上调抑炎因子(IL-4、IL-10)的表达/含量来缓解沙门氏菌对Caco-2细胞的损伤和大肠杆菌介导的雏鸭十二指肠的损伤的研究相似。此外,EPS43由半乳糖、甘露糖和葡萄糖等单糖组成,而含有果糖、鼠李糖和葡萄糖等单糖的乳酸菌胞外多糖可增强巨噬细胞抗炎能力,抑制TNF-α的分泌[9]。综上所述,EPS43不仅可通过抑制促炎因子的表达来减轻病原菌刺激引起的强烈炎症反应,还可通过上调抑炎性因子的表达发挥抗炎作用,从而减轻肠道组织的炎症损伤。

3.4 EPS43对S. Tm感染小鼠回肠紧密连接相关蛋白mRNA表达的影响

肠上皮屏障被破坏后,肠腔中的病原体、毒素和过敏原等会移位进入肠道固有层,引起炎症反应[23]。肠上皮屏障由肠道黏膜上皮细胞和细胞间紧密连接构成,Occludin和Claudin-1是构成细胞间紧密连接的重要物质,对维持肠道屏障结构和肠黏膜通透性具有重要作用[9]。本研究结果显示,模型组小鼠回肠OccludinClaudin-1 mRNA相对表达量较对照组显著降低,这说明模型组小鼠肠上皮屏障结构的完整性被破坏,肠道内的S. Tm及其有毒产物可能会穿过肠上皮屏障进入血液,这与模型组小鼠脾脏肿大和组织坏死的结果相印证。相比模型组,预防组小鼠回肠OccludinClaudin-1 mRNA相对表达量提高,且与对照组相比无显著差异。前期研究表明,EPS43可以通过上调健康小鼠肠道组织中OccludinClaudin-1的表达来提高肠道屏障功能[11]。本研究所用动物非健康小鼠,但OccludinClaudin-1表达的变化与前期结果一致,同时与罗伊氏乳杆菌胞外多糖[12]显著上调断奶仔猪空肠中紧密连接相关蛋白mRNA相对表达量的结果相似。研究表明,TNF-α、IL-1β和白细胞介素-18(IL-18)会下调Occludin、密封蛋白-3(Claudin-3)和ZO-1的表达[26-27],而IL-10可以提高肠道紧密连接蛋白的表达[23]。因此,EPS43对S. Tm感染小鼠肠道中紧密连接蛋白表达的调控可能与其影响炎症因子的表达有关。此外,乳酸菌胞外多糖可黏附于肠上皮细胞表面并形成与肠道黏液层相似的亲水胶层,这有利于阻碍病原菌对肠上皮细胞及细胞间连接结构的黏附和侵袭;同时,乳酸菌胞外多糖在肠道被微生物降解产生的短链脂肪酸有助于肠上皮细胞的增殖和屏障功能的提高[28]。综上所述,EPS43可以通过维护动物的肠上皮屏障结构和功能来防御病原菌的侵袭和扩散,进而减轻病原菌引起的全身性病症。

3.5 EPS43对S. Tm感染小鼠回肠TLR4/MyD88/NF-κB/NLRP3信号通路表达的影响

研究表明,S. Tm细胞壁的主要成分脂多糖(LPS)可直接与TLR4结合[29-31];MyD88是Toll样受体家族成员下游炎症信号通路的典型衔接子,在LPS侵染雏鸡十二指肠中的表达显著上调[7];NF-κB是调节大多数促炎细胞因子表达的重要转录因子,在沙门氏菌感染后的肉仔鸡回肠中的表达有上升趋势[21];NLRP3炎性小体作为炎症反应的中心,启动阶段由启动信号调控NLRP3等表达提高,激活阶段由激活信号诱导产生成熟的IL-1β/IL-18,从而驱动炎症,在病原微生物感染的过程中发挥重要作用[32-34]。为进一步探究EPS43对S. Tm感染小鼠肠道损伤的预防机制,本文探究了NLRP3及其上游关键信号通路TLR4/MyD88/NF-κB的表达情况。结果显示,模型组小鼠回肠MyD88、NF-κB和NLRP3表达较对照组提高,而预防组回肠MyD88、NF-κB和NLRP3表达较模型组降低,其中NLRP3表达的降低达到显著水平,这说明EPS43可以通过下调MyD88/NF-κB/NLRP3信号通路的表达来抑制NLRP3炎症小体的启动和激活,进而防止炎症反应的级联扩大,这与田蓟苷[29]减轻LPS诱导RAW264.7细胞炎症反应的作用机制相似。不同的是,本研究中预防组和模型组回肠TLR4表达较对照组降低,其中模型组降低程度达到显著趋势,故MyD88的上游通路尚不能确定。研究表明,S. Tm自身表达4种Toll样受体配体:TLR4配体LPS、Toll样受体2(TLR2)配体细菌脂蛋白和磷壁酸以及Toll样受体5(TLR5)配体鞭毛蛋白等,相关Toll样受体在识别S. Tm感染过程中各自发挥作用,其中TLR2和TLR4在共同识别、抵抗S. Tm的感染过程中存在某种协同作用,而不同细胞表达的Toll样受体在识别相同的细菌抗原刺激时也可能存在负反馈调控作用[18]。因此,本研究中模型组和预防组小鼠回肠TLR4表达的降低可能与信号通路交叉调控、宿主免疫应答中心转移等有关,具体缘由需进一步研究。

4 结论

EPS43可以通过上调抑炎因子(IL-10)和紧密连接相关蛋白(OccludinClaudin-1)mRNA的表达、下调促炎因子(IL-1βTNF-α)mRNA的表达来防御S. Tm对小鼠回肠黏膜屏障的损伤,进而减轻感染小鼠脾脏的病变程度和体重损失,并发挥抗炎作用,且这种抗炎作用可能与EPS43下调MyD88/NF-κB/NLRP3信号通路的表达有关。
[1]
吴昊, 胡丽颖, 路娟娥. 鼠伤寒沙门氏菌的感染及治疗研究进展[J]. 食品与发酵工业, 2024, 50(16):359-366.

WU H, HU L Y, LU J E. Research progress on infection and treatment of Salmonella Typhimurium[J]. Food and Fermentation Industries, 2024, 50(16):359-366. (in Chinese)

[2]
陈琳喆, 吴瑗, 仲伟, 等. 翁芩复方对大肠杆菌和沙门氏菌感染雏鸭的预防效果研究[J/OL]. 中国动物传染病学报, 2025:1- 8(2025-09-01)[2025-12-10].https://doi.org/10.19958/j.cnki.cn31-2031/s.20250829.005.html.

CHEN L Z, WU Y, ZHONG W, et al. Efficacy of Wengqin decoction against infection of Escherichia coli and Salmonella in ducklings[J/OL]. Chinese Journal of Animal Infectious Diseases, 2025:1- 8(2025-09-01)[2025-12-10].https://doi.org/10.19958/j.cnki.cn31-2031/s.20250829.005.html. (in Chinese)

[3]
XIE M M, CHEN K C, CHAN E W C, et al. Identification and genetic characterization of two conjugative plasmids that confer azithromycin resistance in Salmonella[J]. Emerging Microbes & Infections, 2022, 11(1):1049-1057.

[4]
张滋龙, 杨雅娴, 李竞萌, 等. 萌发芝麻提取物改善鼠伤寒沙门氏菌感染小鼠焦虑和肠道炎症[J]. 粮油食品科技, 2024, 32(6):151-160.

ZHANG Z L, YANG Y X, LI J M, et al. Germinated sesame extract improving anxiety and gut inflammation in Salmonella Typhimurium-infected mice[J]. Science and Technology of Cereals,Oils and Foods, 2024, 32(6):151-160. (in Chinese)

[5]
李潭放, 耿祥飞, 杨健, 等. 菊茎叶提取物对沙门氏菌感染肉仔鸡生产性能、抗氧化功能和肠道免疫功能的影响[J]. 中国畜牧杂志, 2025, 61(1):333-339.

LI T F, GENG X F, YANG J, et al. Effects of chrysanthemum stem and leaf extract on growth performance,antioxidant function,and intestinal immune function in broiler chickens infected with Salmonella[J]. Chinese Journal of Animal Science, 2025, 61(1):333-339. (in Chinese)

[6]
杨娟, 王宏雨, 陈婕婷, 等. 珊瑚猴头菌粗多糖对DSS诱导的小鼠慢性肠炎的预防作用[J]. 菌物学报, 2026, 45(2):250151.

YANG J, WANG H Y, CHEN J T, et al. Preventive effects of Hericium coralloides crude polysaccharides on DSS-induced chronic colitis in mice[J]. Mycosystema, 2026, 45(2):250151. (in Chinese)

[7]
陈枭枭, 杨舒展, 陈浩祥, 等. 白术多糖对脂多糖处理下雏鹅十二指肠肠道屏障功能的调节作用[J]. 动物营养学报, 2024, 36(2):981-994.

CHEN X X, YANG S Z, CHEN H X, et al. Regulation effects of polysaccharide of Atractylodes macrocephala Koidz on intestinal barrier function in duodenum of goslings treated with lipopolysaccharide[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):981-994. (in Chinese)

[8]
陈茉, 白书宁, 王行, 等. 南瓜多糖对大肠杆菌感染小鼠肠道损伤的保护作用及其机制研究[J]. 动物营养学报, 2021, 33(12):7070-7077.

CHEN M, BAI S N, WANG X, et al. Protective effects of pumpkin polysaccharide on intestinal injury of mice infected by enterotoxigenic Escherichia coli and its mechanism[J]. Chinese Journal of Animal Nutrition, 2021, 33(12):7070-7077. (in Chinese)

[9]
李鸿萱. 解淀粉芽孢杆菌JM033胞外多糖结构表征及免疫调节作用研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2023.

LI H X.Structural characterization and immunomodulatory effects of the extracellular polysaccharide of Bacillus amyloliquefaciens JM033[D].Master’s Thesis.Harbin:Northeast Agricultural University, 2023. (in Chinese)

[10]
王丹其, 胡丹, 韩瑨. 鼠李糖乳酪杆菌B6胞外多糖对脂多糖诱导Caco-2细胞损伤的影响[J/OL]. 食品与发酵工业, 2025:1- 10(2025-10-21)[2025-12-10].https://doi.org/10.13995/j.cnki.11-1802/ts.043795.html.

WANG D Q, HU D, HAN J. Effects of Lacticaseibacillus rhamnosus B6 exopolysaccharides on lipopolysaccharide-induced damage in Caco-2 cells[J/OL]. Food and Fermentation Industries, 2025:1- 10(2025-10-21)[2025-12-10].https://doi.org/10.13995/j.cnki.11-1802/ts.043795.html. (in Chinese)

[11]
官小凤, 钟晓霞, 韩凯, 等. 植物乳杆菌cqf-43胞外多糖对小鼠生长和肠道健康的影响[J]. 动物营养学报, 2025, 37(5):3425-3441.

GUAN X F, ZHONG X X, HAN K, et al. Effects of Lactobacillus plantarum cqf-43 exopolysaccharides on growth and intestinal health of mice[J]. Chinese Journal of Animal Nutrition, 2025, 37(5):3425-3441. (in Chinese)

[12]
阮诗慧, 徐文拓, 刘会亮, 等. 罗伊氏乳杆菌胞外多糖对断奶仔猪生长性能、血清生化指标以及肠道健康的影响[J]. 动物营养学报, 2025, 37(10):6637-6650.

RUAN S H, XU W T, LIU H L, et al. Effects of exopolysaccharides from Lactobacillus reuteri on growth performance,serum biochemical indexes,and intestinal health of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2025, 37(10):6637-6650. (in Chinese)

[13]
赵濛, 谢淑玲, 李晓奇, 等. 乳酸菌胞外多糖对羔羊胃肠道组织形态和肠道组织紧密连接相关基因及蛋白表达的影响[J]. 动物营养学报, 2025, 37(8):5446-5462.

ZHAO M, XIE S L, LI X Q, et al. Effects of extracellular polysaccharides from lactic acid bacteria on morphology of gastrointestinal tissues and expression of tight junction related genes and proteins in intestinal tissues of lambs[J]. Chinese Journal of Animal Nutrition, 2025, 37(8):5446-5462. (in Chinese)

[14]
丁钰, 鲍成玲, 钟晓霞, 等. 植物乳杆菌cqf-43及其代谢产物对断奶仔猪生长性能、抗氧化和免疫功能的影响[J]. 中国畜牧杂志, 2024, 60(4):312-317.

DING Y, BAO C L, ZHONG X X, et al. Effects of Lactobacillus plantarum cqf-43 and its metabolites on growth performance,antioxidant function,and immune function in weaned piglets[J]. Chinese Journal of Animal Science, 2024, 60(4):312-317. (in Chinese)

[15]
梁浩, 董立迎, 曹飞, 等. 甘露聚糖肽对实验性鼠伤寒沙门氏菌感染小鼠肠道屏障和肠道菌群的影响[J/OL]. 四川农业大学学报, 2024:1- 16(2024-06-12)[2025-12-10].https://doi.org/10.16036/j.issn.1000-2650.202405379.html.

LIANG H, DONG L Y, CAO F, et al. Effects of mannatide on intestinal barrier and intestinal flora in mice infected with experimental Salmonella Typhimurium[J/OL]. Journal of Sichuan Agricultural University, 2024:1- 16(2024-06-12)[2025-12-10].https://doi.org/10.16036/j.issn.1000-2650.202405379.html. (in Chinese)

[16]
单强, 王雪, 朱要宏, 等. 鼠李糖乳杆菌抗炎机制及其在防治家畜疾病中的应用前景[J]. 畜牧兽医学报, 2023, 54(11):4537-4550.

SHAN Q, WANG X, ZHU Y H, et al. Application prospect of anti-inflammatory mechanism of Lactobacillus rhamnosus and its prevention and treatment in livestock diseases[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(11):4537-4550. (in Chinese)

[17]
张彪, 路娟娥, 韩文英, 等. 沙门氏菌感染肠上皮细胞外泌体宿主蛋白质组学分析[J]. 食品科学, 2022, 43(6):132-140.

ZHANG B, LU J E, HAN W Y, et al. Host-derived proteomics analysis of exosomes secreted by intestinal epithelial cells infected with Salmonella Typhimurium[J]. Food Science, 2022, 43(6):132-140. (in Chinese)

[18]
战仁慧, 张建. Toll样受体在伤寒沙门氏菌感染过程中的作用机制[J]. 中国免疫学杂志, 2013, 29(10):1098-1102.

ZHAN R H, ZHANG J. Mechanism of Toll-like receptors in Salmonella Typhimurium infection[J]. Chinese Journal of Immunology, 2013, 29(10):1098-1102. (in Chinese)

[19]
王玉洁. 屎肠球菌WEFA23胞外多糖拮抗单增李斯特菌感染的作用及其在乳制品中的应用[D]. 硕士学位论文. 南昌: 南昌大学, 2023.

WANG Y J.Effect of exopolysaccharide from Enterococcus faecium WEFA23 against Listeria monocytogenes infection and its application in dairy products[D].Master’s Thesis. Nanchang: Nanchang University, 2023. (in Chinese)

[20]
张易安, 郭琰娜, 刘妍, 等. 火炭母通过调控TLR4-TBK1信号通路改善鼠伤寒沙门菌感染小鼠空肠的炎症反应[J]. 中国兽医杂志, 2023, 59(11):132-139.

ZHANG Y A, GUO Y N, LIU Y, et al. Polygonum chinense L. alleviated jejunum inflammatory response in mice infected by Salmonella Typhimurium through regulating TLR4-TBK1 signaling pathway[J]. Chinese Journal of Veterinary Medicine, 2023, 59(11):132-139. (in Chinese)

[21]
GALÁN J E. Salmonella Typhimurium and inflammation:a pathogen-centric affair[J]. Nature Reviews Microbiology, 2021, 19(11):716-725.

[22]
舒鑫, 黄雯霞, 马世越, 等. 植物乳杆菌后生元缓解小鼠沙门氏菌感染的作用效果及机理[J]. 微生物学报, 2024, 64(4):1095-1109.

SHU X, HUANG W X, MA S Y, et al. Effects and mechanism of Lactobacillus plantarum postbiotics on protecting against Salmonella enterica Typhimurium infection in mice[J]. Acta Microbiologica Sinica, 2024, 64(4):1095-1109. (in Chinese)

[23]
童乐, 李梅, 唐小涵, 等. 白细胞介素-10在维持肠道稳态中的作用研究进展[J]. 中国细胞生物学学报, 2023, 45(9):1409-1418.

TONG L, LI M, TANG X H, et al. Research progress on the role of interleukin-10 in maintaining intestinal homeostasis[J]. Chinese Journal of Cell Biology, 2023, 45(9):1409-1418. (in Chinese)

[24]
PATANKAR J V, BECKER C. Cell death in the gut epithelium and implications for chronic inflammation[J]. Nature Reviews Gastroenterology & Hepatology, 2020, 17(9):543-556.

[25]
余秋颖, 赵峥, 杨聪燕, 等. 白藜芦醇对Caco-2细胞损伤的缓解作用[J]. 中国食品学报, 2025, 25(6):66-75.

YU Q Y, ZHAO Z, YANG C Y, et al. Alleviating effect of resveratrol on Caco-2 cell damage[J]. Journal of Chinese Institute of Food Science and Technology, 2025, 25(6):66-75. (in Chinese)

[26]
LI Y L, LIU J, PONGKORPSAKOL P, et al. Relief effects of icariin on inflammation-induced decrease of tight junctions in intestinal epithelial cells[J]. Frontiers in Pharmacology, 2022, 13:903762.

[27]
张鹤馨, 曲悠扬, 陈若瑄, 等. 绿原酸通过抑制NF-κB/NLRP3通路介导的细胞焦亡改善慢性应激致大鼠肠道损伤[J]. 畜牧兽医学报, 2025, 56(12): 6502-6512.

ZHANG H X, QU Y Y, CHEN R X, et al. Chlorogenic acid ameliorates chronic stress-induced intestinal injury in rats by inhibiting NF-κB/NLRP3 pathway-mediated pyroptosis[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(12): 6502-6512. (in Chinese)

[28]
王琪, 肖融, 王敬, 等. 乳酸菌胞外多糖对动物肠道屏障功能的调控作用及机制[J]. 动物营养学报, 2021, 33(7):3657-3664.

WANG Q, XIAO R, WANG J, et al. Regulation and mechanism of lactic acid bacteria exopolysaccharide on intestinal barrier function of animals[J]. Chinese Journal of Animal Nutrition, 2021, 33(7):3657-3664. (in Chinese)

[29]
张兴宇, 徐磊, 等. 卡德尔业·卡德尔, 田蓟苷下调TLR4/Myd88/NF-κB信号通路抑制NLRP3炎症小体和炎症反应[J]. 药学学报, 2024, 59(7):2012-2019.

ZHANG X Y, XU L, KADER K, et al. Tilianin downregulated TLR4/Myd88/NF-κB signaling pathway to inhibit NLRP3 inflammasome and inflammatory response[J]. Acta pharmaceutica Sinica, 2024, 59(7):2012-2019. (in Chinese)

[30]
李春林, 张翥, 曾荣荣, 等. 黄连水提物对LPS诱导的猪肠道上皮细胞IL-1β、IL-6、TNF-α mRNA表达及NF-κB/MAPK信号通路的调控作用[J]. 中国兽医学报, 2020, 40(2):361-368.

LI C L, ZHANG Z, ZENG R R, et al. Effect of Rhizoma coptidis water extract on expression of IL-1β,IL-6,TNF-α mRNA and regulation of NF-κB/MAPK signal pathways in porcine intestinal epithelial cells induced by LPS[J]. Chinese Journal of Veterinary Science, 2020, 40(2):361-368. (in Chinese)

[31]
董书含, 杜云鹏, 李楠, 等. 基于TLR4/Myd88/NF-κB/NLRP3通路探讨膈下逐瘀汤加减方对慢性输卵管炎性不孕症的作用机制[J]. 时珍国医国药, 2025, 36(7):1234-1241.

DONG S H, DU Y P, LI N, et al. Exploring the mechanism of modified Gexia Zhuyu decoction in chronic salpingitis-induced infertility with Qi stagnation and blood stasis syndrome based on the TLR4/MyD88/NF-κB/NLRP3 signaling pathway[J]. Journal of Li-Shizhen Traditional Chinese Medicine, 2025, 36(7):1234-1241. (in Chinese)

[32]
徐笑松, 杜丽鹏, 罗紫悦, 等. 肉苁蓉多糖抑制NLRP3炎性小体活化改善肠道衰老[J/OL]. 中国实验方剂学杂志, 2025:1- 10(2025-11-12)[2025-12-10].https://doi.org/10.13422/j.cnki.syfjx.20252137.html.

XU X S, DU L P, LUO Z Y, et al. Cistanche polysaccharides inhibit NLRP3 inflammasome activation to improve intestinal aging[J/OL]. Chinese Journal of Experimental Traditional Medical Formulae, 2025:1- 10(2025-11-12)[2025-12-10].https://doi.org/10.13422/j.cnki.syfjx.20252137.html. (in Chinese)

[33]
ZHANG C, WANG X, WANG C, et al. Qingwenzhike prescription alleviates acute lung injury induced by LPS via inhibiting TLR4/NF-κB pathway and NLRP3 inflammasome activation[J]. Frontiers in Pharmacology, 2021, 12:790072.

[34]
高雪涵, 卫麟娜, 董品志, 等. NLRP3炎症小体在感染性疾病中的作用研究进展[J]. 中国病原生物学杂志, 2024, 19(11):1371-1376.

GAO X H, WEI L N, DONG P Z, et al. Research progress on the role of NLRP3 inflammasome in infectious diseases[J]. Journal of Parasitic Biology, 2024, 19(11):1371-1376. (in Chinese)

文章导航

/