研究论文

牛瘤胃源乳酸乳球菌GRJD005的体外益生特性与代谢特征解析

  • 刘倩 , 1, 2 ,
  • 孙庆余 1 ,
  • 钟荣珍 , 1, 3, *
展开
  • 1 中国科学院东北地理与农业生态研究所, 吉林省饲料加工与草食家畜精准饲养跨区域合作科技创新中心, 长春 130102
  • 2 中国科学院大学, 北京 100049
  • 3 吉林格润佳生物科技有限公司, 长春 130000
*钟荣珍,研究员,博士生导师,E-mail:

刘 倩(1996—),女,河北保定人,博士研究生,研究方向为反刍家畜胃肠道微生态及益生菌调控。E-mail:

Office editor: 菅景颖

收稿日期: 2025-12-30

  网络出版日期: 2026-08-13

基金资助

国家自然科学基金联合基金项目(U23A20234)

长春市科技发展计划项目(24GXYSZZ11)

宁夏回族自治区重点研发计划项目(2025BBF02010)

日喀则市重点研发项目(RKZ2025ZD-013)

吉林省与中国科学院科技合作高新技术产业化专项资金项目(2025SYHZ0017)

Analysis of in Vitro Probiotic Properties and Metabolic Characteristics of Bovine Rumen-Derived Lactococcus lactis GRJD005

  • LIU Qian , 1, 2 ,
  • SUN Qingyu 1 ,
  • ZHONG Rongzhen , 1, 3, *
Expand
  • 1 Jilin Province Feed Processing and Ruminant Precision Breeding Cross Regional Cooperation Technology Innovation Center, Northeast Institute of Geography and Agroecology, Chinese Academy of Sciences, Changchun 130102, China
  • 2 University of Chinese Academy of Sciences, Beijing 100049, China
  • 3 Jilin Green+Biotechnology Co., Ltd., Changchun 130000, China
*professor, E-mail:

Received date: 2025-12-30

  Online published: 2026-08-13

摘要

为筛选对反刍动物胃肠道环境具有潜在适应优势的益生菌资源,本研究从和牛瘤胃液中分离出1株乳酸菌,完成种属鉴定后通过体外试验系统评价其益生特性,并采用非靶向代谢组学解析其代谢特征。结果表明:从和牛瘤胃液中成功分离获得1株乳酸菌,命名为GRJD005,基于菌落形态特征和16S rDNA基因序列分析,该菌株被鉴定为乳酸乳球菌(Lactococcus lactis)。菌株GRJD005在37 ℃、pH 7.0条件下生长良好,4 h进入对数生长期,16 h达到生长稳定期;其在pH≥5.0环境中可正常生长,pH≤3.0时生长则受到明显抑制。菌株GRJD005对牛胆盐和猪胆盐均表现出较强耐受性,在0.1%~0.6%浓度下培养24 h后存活率均高于初始值(100%);经人工胃液、人工肠液以及人工胃肠液处理3 h后存活率均超过80%。该菌株对肠道沙门氏菌和金黄色葡萄球菌均具有抑菌活性;其对氯霉素、万古霉素、四环素等9种抗生素表现出敏感,仅对红霉素、庆大霉素和环丙沙星表现出耐药。非靶向代谢组学分析表明,菌株GRJD005在次级胆汁酸生物合成、2-氧羧酸代谢以及D-氨基酸代谢等通路中显著富集,并积累了石胆酸、乳酸、亚精胺等多种与应激适应及生物活性相关的代谢物,提示其益生特性具有相应的代谢基础。综上得出,本试验从和牛瘤胃液中分离得到的乳酸乳球菌GRJD005具备良好的体外益生潜能和安全性,可作为反刍动物益生菌候选菌株进一步研究与开发。

本文引用格式

刘倩 , 孙庆余 , 钟荣珍 . 牛瘤胃源乳酸乳球菌GRJD005的体外益生特性与代谢特征解析[J]. 动物营养学报, 2026 , 38(8) : 6230 -6245 . DOI: 10.12418/CJAN2026.498

Abstract

To screen for probiotic resources with potential adaptive advantages for ruminant gastrointestinal environments, one lactic acid bacterium was isolated from the rumen fluid of Wagyu cattle in this study. After species identification, its probiotic properties were systematically evaluated through in vitro experiments, and its metabolic characteristics were analyzed using untargeted metabolomics. The results showed that one lactic acid bacterial strain, designated GRJD005, was successfully isolated from Wagyu rumen fluid. Based on colony morphology and 16S rDNA gene sequence analysis, the strain was identified as Lactococcus lactis. The strain GRJD005 grew well at 37 ℃ and pH 7.0, entering the logarithmic growth phase at 4 h and reaching the stationary phase at 16 h. It grew normally in environments with pH≥5.0, but growth was significantly inhibited at pH≤3.0. The strain GRJD005 exhibited strong tolerance to both bovine and porcine bile salts. After being cultured for 24 hours at concentrations ranging from 0.1% to 0.6%, the survival rate of the strain GRJD005 was consistently higher than the initial value (100%). The survival rates of the strain GRJD005 exceeded 80% after 3-hour treatment in artificial gastric fluid, artificial intestinal fluid and artificial gastric and intestinal fluid. The strain GRJD005 demonstrated antibacterial activity against Salmonella enterica and Staphylococcus aureus. It was sensitive to nine antibiotics, including chloramphenicol, vancomycin and tetracycline, but resistant to erythromycin, gentamicin and ciprofloxacin. Non-targeted metabolomics analysis revealed significant enrichment of the strain GRJD005 in metabolic pathways such as secondary bile acid biosynthesis, 2-oxocarboxylic acid metabolism, and D-amino acid metabolism. The strain accumulated various metabolites related to stress adaptation and bioactivity, including lithocholic acid, lactic acid and spermidine, indicating a corresponding metabolic basis for its probiotic properties. In conclusion, Lactococcus lactis GRJD005 isolated from rumen fluid of Wagyu cattle in this study possesses good in vitro probiotic potential and safety, and can be further studied and developed as a candidate probiotic strain for ruminants.

反刍动物胃肠道健康是影响其生产性能、免疫状态及整体养殖效益的核心因素。随着畜牧养殖业向绿色高效方向转型,通过营养调控手段改善胃肠道微生态已成为研究热点。益生菌作为一种可替代抗生素的绿色饲料添加剂,在维持胃肠道菌群平衡、增强宿主免疫防御及促进营养物质消化吸收等方面具有重要作用,其在反刍动物生产中的应用潜力日益受到关注[1-2]
乳酸乳球菌(Lactococcus lactis)属于链球菌科(Streptococcaceae),是一种革兰氏阳性、不产芽孢的兼性厌氧乳酸菌,可通过分泌有机酸、细菌素等代谢产物,抑制病原菌、调节胃肠道pH,并促进有益微生物定植[3]。然而,目前商业化应用的乳酸菌制剂多来源于乳制品或单胃动物肠道,这些菌株虽具有一定的益生功能,但对反刍动物复杂胃肠道环境适应能力往往有限[4-5]。瘤胃作为反刍动物特有的发酵器官,具有低pH、高渗透压、复杂微生物群落等环境特征[6],其中定植的乳酸乳球菌在长期进化过程中可能形成了独特的适应性机制。从宿主自身胃肠道分离的益生菌,由于具有“宿主-微生物共进化”背景,往往比外源菌株表现出更好的定植效率与功能稳定性。Maldonado-Góme等[7]发现,益生菌能否在宿主肠道内成功、持久地定植,高度依赖于其与宿主原有菌群的兼容性,而宿主源菌株通常具有更好的兼容性;Douillard等[8]通过基因组比较发现不同来源的乳酸菌在基因组成上存在显著差异,肠道源菌株含有更多与宿主互作(如黏附、免疫调节)相关的基因。因此,从瘤胃这一特殊生态位筛选益生菌,是获得具有宿主特异性适应优势菌株的理想途径。
尽管已有研究表明外源添加乳酸菌对改善幼龄反刍动物的生长性能与肠道健康具有积极作用[9],但当前对具有宿主适应优势的瘤胃源乳酸乳球菌的挖掘仍不充分。现有研究多集中于其体外益生特性的初步表型描述,而从代谢组学等系统生物学角度深入解析其耐酸、耐胆盐等关键益生表型背后的物质基础与代谢调控网络的研究尚属空白。这种机制层面研究的不足,制约了基于宿主适应性的益生菌菌株的筛选与精准评估。
为此,本研究提出一种“表型组-代谢组”关联解析策略,以和牛瘤胃液为样本,分离筛选具有优良体外益生特性的乳酸乳球菌,并整合传统体外评价与非靶向代谢组学技术。通过该策略,旨在获得对反刍动物胃肠道环境具有潜在适应优势的乳酸乳球菌,并从代谢物层面系统揭示其益生功能的物质基础与潜在代谢调控网络,从而为开发宿主适应性强、功能明确的靶向益生菌制剂提供菌株资源与理论依据。

1 材料与方法

1.1 试验材料

1.1.1 主要试剂

本研究所用培养基主要组分均购自国内专业生物技术公司。其中,蛋白胨与牛肉膏为北京奥博星生物技术有限责任公司产品;酵母粉、琼脂粉及吐温-80购自安徽白鲨生物科技有限公司;葡萄糖、硫酸镁、硫酸锰购自天津市光复科技发展有限公司;柠檬酸氢二铵、磷酸氢二钾、乙酸钠为国药集团化学试剂有限公司产品;细菌微量生化反应鉴定管均购自广东环凯微生物科技有限公司;用于耐受性评价的牛胆盐与猪胆盐由北京索莱宝科技有限公司提供;抗生素药敏纸片则由湖南比克曼生物科技有限公司提供;乳酸含量测定试剂盒购自南京建成生物工程研究所。

1.1.2 仪器设备

DHS-NX-3R型高速台式离心机,北京鼎昊源科技有限公司;BM2000型生物显微镜,宁波永兴光学仪器有限公司;PHS-3E型pH计,上海雷磁仪器有限公司;CBV45S超净工作台,北京尚方京工科技有限公司;XS-ZDIA型恒温振荡培养箱,象尚昱科(上海)实验仪器有限公司;LC-SPX-70B型生化培养箱,上海力辰仪器科技有限公司;DXL-100型高压灭菌器,山东德祥仪器有限公司;UResder Eyes Ⅰ型全波长酶联免疫分析仪,杭州优米仪器有限公司;DW-86L437T型-80 ℃低温冰箱,澳柯玛股份有限公司。

1.1.3 样品来源

本试验经中国科学院东北地理与农业生态研究所实验动物福利伦理委员会审核通过(审批号:202407-01)。样品来源为吉林省长春市公主岭试验基地育肥期健康和牛的瘤胃液。所有试验动物在试验采样前至少1个月内未在其饲粮中添加任何外源益生菌,以确保所分离菌株为瘤胃内源微生物,排除外源菌干扰。

1.1.4 指示性菌株

本研究所用的指示性菌株为金黄色葡萄球菌(Staphylococcus aureus)ATCC25923与肠道沙门氏菌(Salmonella enterica)ATCC14028,均由中国农业科学院特产研究所特种动物营养与饲料团队馈赠。

1.2 试验方法

1.2.1 菌株分离

无菌采集健康成年和牛的瘤胃液10 mL,加入到含有90 mL无菌磷酸盐缓冲液(PBS)的锥形瓶中,振荡混匀后室温放置。取100 μL过滤后的上清混合液进行连续倍比稀释,吸取10-4、10-5、10-6、10-7梯度的稀释液各100 μL,均匀涂布于MRS固体培养基,置于37 ℃恒温培养箱中过夜培养;待长出菌落后,挑取单克隆菌落反复划线进行纯化。对纯化后的单克隆菌落进行形态学观察并记录其大小、形态、色泽、隆起情况及边缘特征等;进一步通过革兰氏染色及光学显微镜观察其细胞形态。

1.2.2 分子生物学鉴定

培养过夜后的菌液经离心后收集菌体沉淀,使用细菌基因组DNA提取试剂盒[生工生物工程(上海)股份有限公司]提取其总DNA,并以此作为PCR模板,采用细菌16S rDNA通用引物27F(5'-AGAGTTTGATCCTGGCTCAG-3')和1492R(5'-GGTTACCTTGTTACGACTT-3')进行PCR扩增。PCR反应体系包含2×Premix Taq 12.5 μL,上、下游引物各1 μL,基因组DNA 1 μL,用双蒸水(ddH2O)补足至25 μL。PCR扩增程序设定如下:95 ℃预变性5 min;随后进行30个循环,每个循环包括94 ℃变性30 s,57 ℃退火30 s与72 ℃延伸90 s;循环结束后,于72 ℃终延伸10 min。扩增产物经1.5%琼脂糖凝胶电泳验证后,将符合预期大小的目标条带切胶回收,并送至生工生物工程(上海)股份有限公司完成测序。将所获得序列提交至NCBI数据库,利用BLAST工具进行同源相似性比对分析。

1.2.3 生理生化特征鉴定

将初步分离得到的菌株接种到MRS液体培养基中培养后,参照《常见细菌系统鉴定手册》[10],使用细菌微量生化鉴定管对其明胶液化、V-P反应、糖发酵等生理生化特征进行初步鉴定。

1.2.4 生长曲线测定

将活化后的菌液以2%(v/v)的接种量接种于MRS液体培养基,置于37 ℃恒温培养箱中静置培养48 h。培养期间,每间隔2 h定期取样1次,测定菌液在600 nm处的吸光度(OD600)值,每个培养时间点设置3个平行,取各培养时间点OD600的平均值绘制生长曲线。

1.2.5 产酸性能测定

将活化后的菌液以2%的接种量接种于MRS液体培养基,37 ℃恒温培养48 h,每2 h定期取样测定菌液pH,每个培养时间点设置3个平行,取各培养时间点pH的平均值绘制产酸曲线;分别在培养0、4、8、12、16、24 h时取培养上清液,按试剂盒说明书测定乳酸含量,每个培养时间点设置6个平行。

1.2.6 不同温度下生长曲线测定

将活化后的菌液按2%的接种量接种于MRS液体培养基,并分别置于25、28、30、37、45、55 ℃恒温培养箱中静置培养48 h。培养期间,每间隔2 h定期取样1次,测定菌液的OD600值。每个培养时间点设置3个平行,最终根据各培养时间点OD600的平均值绘制菌株在不同温度下的生长曲线。

1.2.7 耐酸试验

配制初始pH分别为1.0、2.0、3.0、4.0、5.0、6.0的MRS液体培养基。将活化后的菌液以2%接种量分别接种于上述对应pH的培养基中,于37 ℃恒温培养。分别于接种后0、6、12、24、36、48 h时取样测定OD600值。每个培养时间点设置3个平行,根据各培养时间点OD600的平均值绘制菌株在不同pH条件下的生长曲线。

1.2.8 对胆盐的耐受性测定

分别配制含猪胆盐和含牛胆盐的2种MRS培养基,其终浓度梯度均设为0、0.1%、0.2%、0.3%、0.4%、0.5%和0.6%。将活化后的菌液以2%接种量接种于上述培养基,于37 ℃恒温培养。分别于接种后0、6、12、24 h时取样测定OD600值,按照如下公式计算菌株存活率:

存活率(%)=100×At/A0

式中:At为接种后t h时菌液的OD600值;A0为接种后0 h时菌液的OD600值。

1.2.9 对人工胃液和人工肠液的耐受性测定

人工胃液和人工肠液严格参考《中华人民共和国药典》(2020年版)[11]所述方法配制。取1 mL活化后的菌液,在4 ℃条件下以10 000×g离心10 min,弃去上清,获得菌体沉淀,随后加入等体积无菌生理盐水重悬。将上述配制好的人工胃液和人工肠液经0.2 μm无菌滤膜过滤除菌,分别量取10 mL于无菌试管内,向每种消化液中分别加入1 mL制备好的重悬菌液,轻轻混匀后置于37 ℃恒温培养箱中孵育。分别于孵育0和3 h时从各试管中吸取100 μL培养液,使用无菌生理盐水梯度稀释至适宜浓度后,涂布于MRS固体培养基进行活菌计数。菌株的存活率依据孵育0 h的初始活菌进行计算,存活率计算公式为:

存活率(%)=100×log10(人工胃液或人工肠液孵育后活菌数)/log10(人工胃液或人工肠液孵育前活菌数)。

为模拟完整胃肠道消化环境,将菌悬液与人工胃液按上述方法孵育3 h,随后在4 ℃条件下以10 000×g离心10 min收集菌体沉淀,随后使用无菌PBS重悬2次,最终重悬于等体积的新鲜人工肠液中,在37 ℃恒温培养箱中继续孵育3 h,采用与上述相同方法计算存活率。

1.2.10 表面疏水性测定

取活化培养24 h的菌液,经无菌PBS洗涤3次以去除培养基成分。将洗涤后菌体重悬于无菌PBS中并调节菌悬液的初始OD600值为0.25±0.05,记为A初始。取3 mL上述菌悬液至无菌试管内,加入等体积分析纯的二甲苯,将混合物涡旋振荡3 min使其充分乳化,随后置于37 ℃下静置孵育1 h,使有机相与水相完全分层。孵育结束后小心吸取下层水相再次测其OD600值,记为A孵育后。上述操作独立重复测定3次。按照如下公式计算表面疏水率:

表面疏水率(%)=100×(A初始-A孵育后)/A初始

1.2.11 自凝聚能力测定

取活化后的菌液,在4 ℃条件下以10 000×g离心10 min,收集菌体沉淀。菌体沉淀使用无菌PBS充分洗涤后,加入2倍原液体积的无菌PBS再次重悬成菌悬液备用。取2 mL上述菌悬液至无菌试管内,涡旋振荡10 s使其充分混匀,测定其OD600值,记为A初始。随后将该菌悬液试管置于37 ℃恒温培养箱中静置孵育2 h。孵育结束后,小心吸取上清液,测定其OD600值,记为A孵育后。上述操作独立重复测定3次。按照如下公式计算自凝聚率:

自凝聚率(%)=100×(A初始-A孵育后)/A初始

1.2.12 体外抑菌能力测定

所选用病原指示菌为肠道沙门氏菌和金黄色葡萄球菌。将2种病原指示菌活化,分别取100 μL菌液(菌体浓度均调整至109 CFU/mL)均匀涂布于LB固体培养基表面,等待其培养基表面自然干燥。随后使用无菌打孔器在已接种病原菌的平板上呈品字形均匀打孔。向每孔内加入100 μL待测菌悬液(菌体浓度调整至109 CFU/mL),将平板置于恒温培养箱中培养24 h。培养结束后使用游标卡尺精确测量抑菌圈直径。

1.2.13 发酵液排酸后抑菌能力测定

为消除酸的影响,将活化培养后的菌液于4 ℃条件下10 000×g离心10 min,吸取上清后使用无菌1 mol/L氢氧化钠溶液将pH调至6.0,使用0.22 μm无菌滤膜过滤后,以未调节pH的原始发酵液上清为阳性对照,以调节pH的无菌MRS培养基为阴性对照,按照1.2.13中所述方法测定经pH调节后的发酵液上清对病原指示菌(菌体浓度调整至109 CFU/mL)的抑菌效果。

1.2.14 对常见抗生素的敏感性测定

参照世界卫生组织(WHO)提供的美国临床标准化委员会(NCCLS)标准进行试验,所用药敏片为氯霉素、红霉素、万古霉素、四环素、克林霉素、庆大霉素、头孢拉定、阿奇霉素、环丙沙星、青霉素、氨苄西林、头孢哌酮。取活化后的菌液200 μL(菌体浓度调整至109 CFU/mL),均匀涂布于MRS固体培养基,使用无菌镊将相应药敏片紧贴于干燥后的平板表面,37 ℃培养箱中过夜培养后使用游标卡尺测量抑菌圈直径。抑菌圈直径判断标准参见本课题组前期发表文章[12]

1.2.15 非靶向代谢组学分析

代谢物提取:设置6个生物学重复(n=6),分别独立培养并取样。吸取100 μL菌液与400 μL冰甲醇混匀,于-20 ℃冰箱静置0.5 h进行蛋白质沉淀,然后4 ℃条件下20 000×g离心10 min,吸取上清液待测,同时每个样品等量取出一定体积混合成质控(QC)样本。
本研究的非靶向代谢组学分析及数据处理方法完全参照文献[12]进行,具体色谱、质谱参数及数据处理流程详见该文献。

1.3 数据统计分析

各项试验均独立重复至少3次,益生特性相关数据经Excel 2019整理后,采用GraphPad Prism 8进行统计作图,结果以“平均值±标准差”表示。代谢组学数据采用R软件(version 4.0)进行统计分析。图形绘制基于联川生物云平台(https://www.omicstudio.cn/tool)完成。

2 结果与分析

2.1 乳酸乳球菌的分离与鉴定

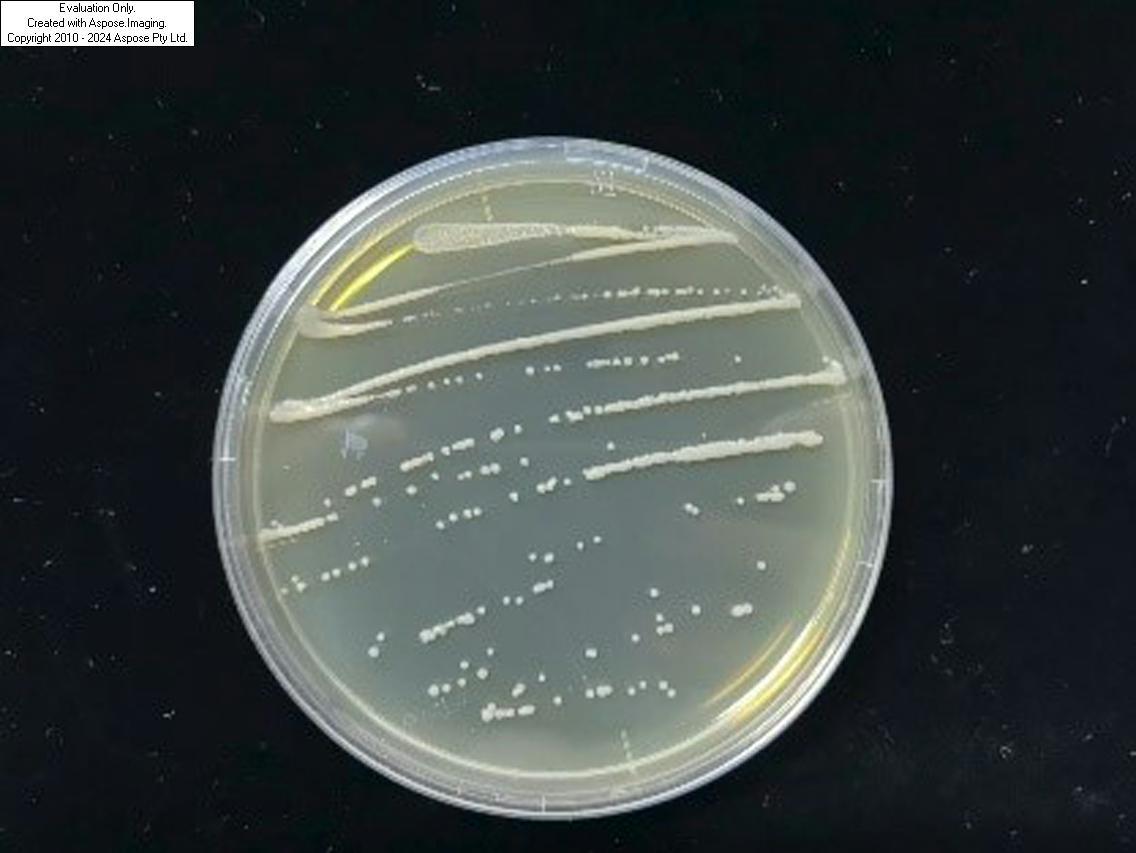
本试验以健康和牛瘤胃液为样本,利用MRS固体培养基进行选择性培养,最终获得1株在平板上生长稳定、形态单一的优势菌株,并将其命名为GRJD005。如图1所示,菌株GRJD005在MRS固体培养基上的菌落颜色呈乳白色,外形呈规则圆形,为扁平凸起状,表面光滑且边缘整齐;经革兰氏染色为阳性,其细胞形态为球形或卵圆形,未观察到芽孢和鞭毛结构。经16S rDNA序列PCR扩增与测序,并将所得序列上传至NCBI数据库,利用BLAST在线工具进行同源性比对。比对结果显示,菌株GRJD005的基因序列与数据库中登录号为LT59049.1和LC021551.1的乳酸乳球菌的同源性相似度达100%。综合其菌落形态、细胞染色特征及16S rDNA序列分析结果,初步确认分离的菌株GRJD005为乳酸乳球菌。菌株GRJD005已于2025年3月12日保藏于中国典型培养物保藏中心(CCTCC),其保藏编号为CCTCC M 2025447。
图1 菌株GRJD005的菌落形态

Fig.1 Colony morphology of strain GRJD005

2.2 菌株GRJD005的生理生化特征

菌株GRJD005的生理生化特征如表1所示,该菌株能发酵甘露糖、半乳糖、果糖、阿拉伯糖、葡萄糖等单糖以及纤维二糖、麦芽糖、蔗糖、乳糖等二糖,但不能发酵山梨糖、棉子糖、鼠李糖,葡萄糖产气试验、过氧化氢试验、吲哚试验、V-P试验、明胶液化试验等均为阴性,七叶苷水解试验呈阳性,符合乳酸乳球菌的典型特征,因此鉴定其为乳酸乳球菌。
表1 菌株GRJD005的生理生化特征

Table 1 Physiological and biochemical characteristics of strain GRJD005

项目 Items 结果Results 项目Items 结果Results
七叶苷 Aesculin + 鼠李糖 Rhamnose -
纤维二糖 Cellobiose + 葡萄糖 Glucose +
麦芽糖 Maltose + 葡萄糖产气试验 glucose gas production test -
甘露糖 Mannose + 甘露醇 Mannitol +
山梨糖 Sorbose - 山梨醇 Sorbitol -
蔗糖 Sucrose + 过氧化氢试验 Hydrogen peroxide test -
棉子糖 Raffinose - 硫化氢 Hydrogen sulfide -
半乳糖Galactose + 硝酸盐产气试验Nitrate gas production test -
乳糖 Lactose + 吲哚试验 Indole test -
木糖 Xylose + V-P试验 V-P test -
果糖 Fructose + 明胶液化试验 Gelatin liquefaction test -
阿拉伯糖 Pectinose + 吲哚乙酸酯水解试验
Indole-3-acetate hydrolysis test
-

+:阳性 positive;-:阴性 negative。

2.3 菌株GRJD005的生长曲线和产酸曲线

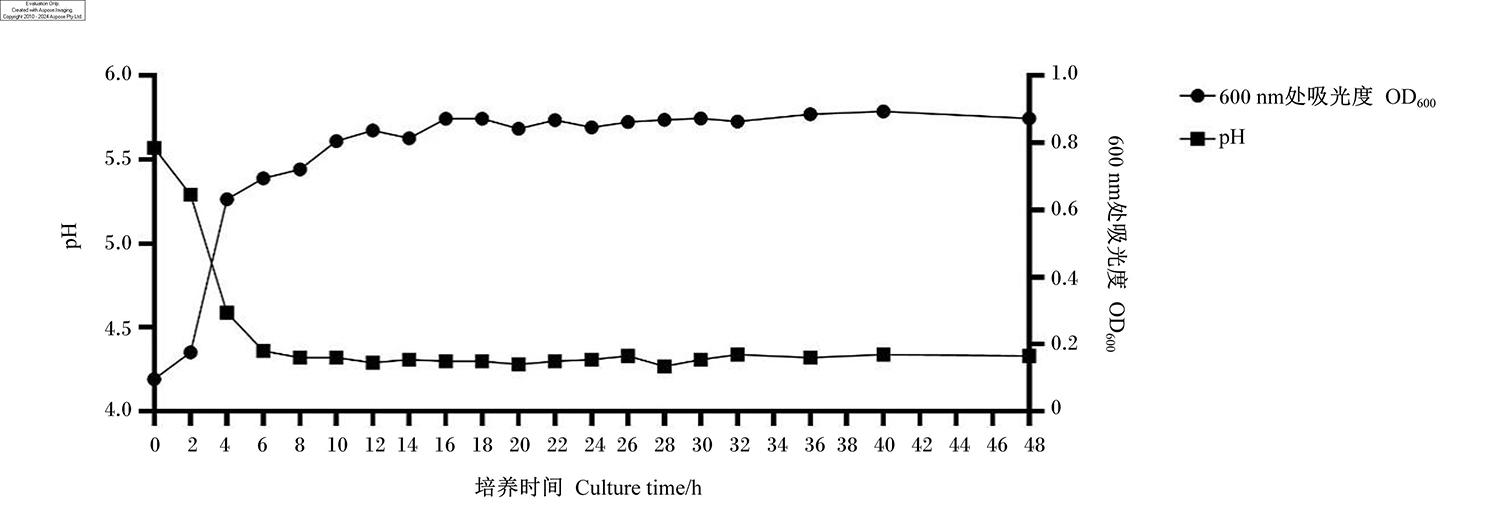
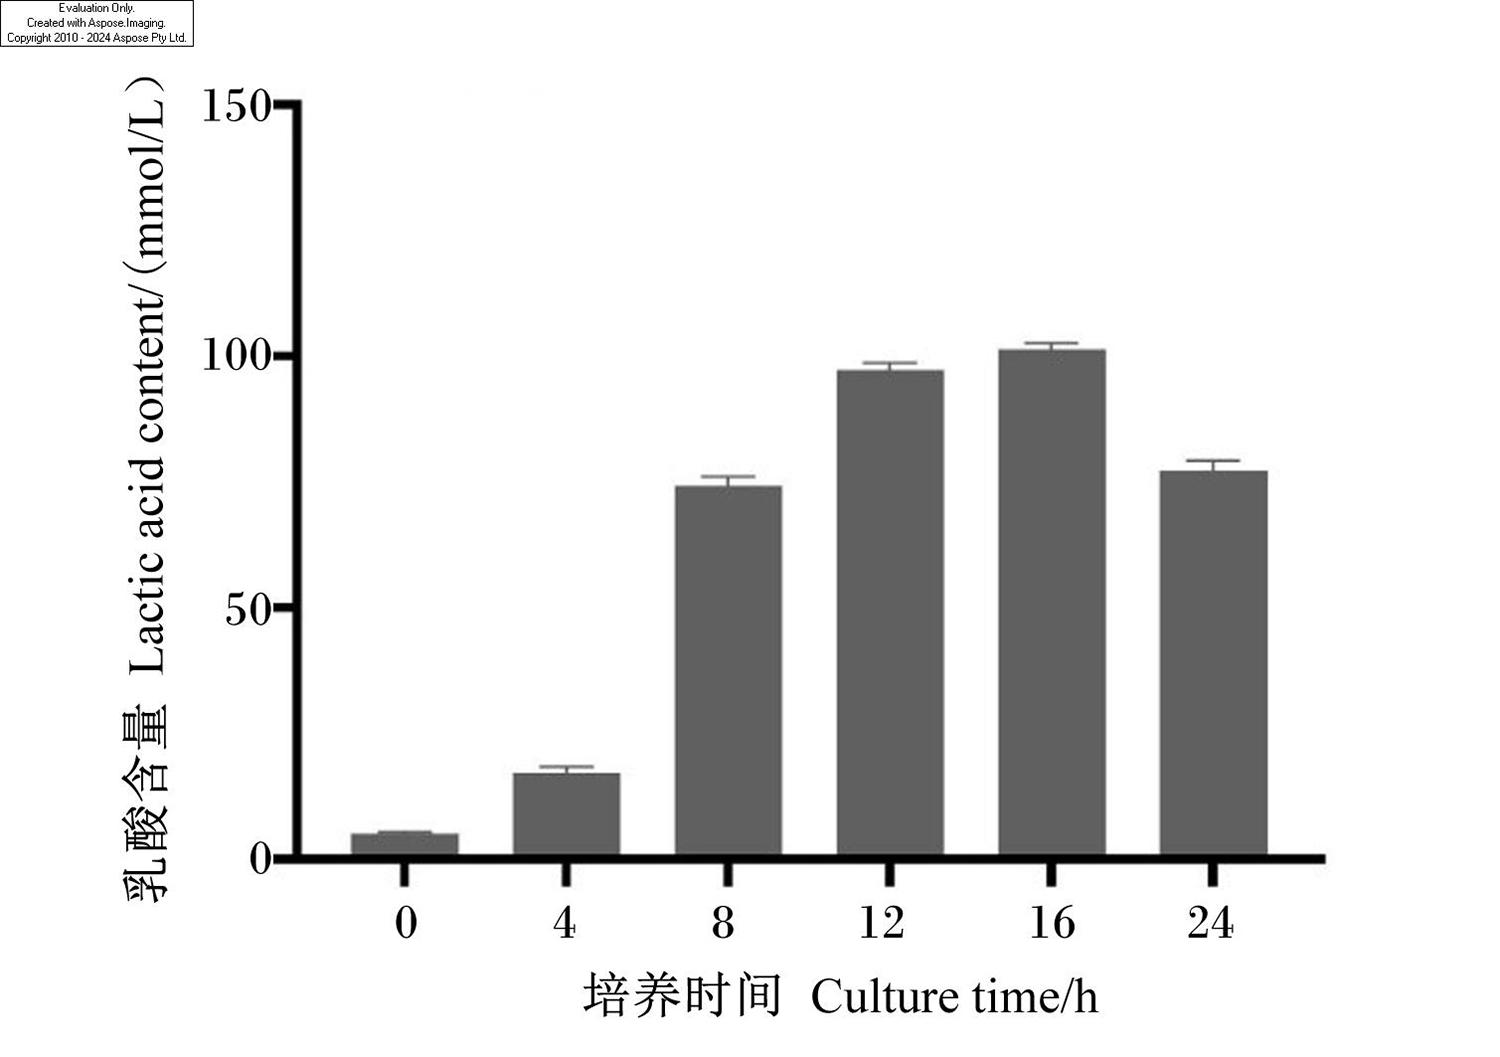
图2所示,菌株GRJD005在接种后前2 h内处于生长迟缓期,细胞增殖缓慢;此后菌株迅速进入对数生长期,直至培养约16 h后生长速率下降,进入稳定期。在这一过程中,菌液pH随菌体生长持续下降,在最初接种2 h内pH从5.57缓慢降至5.29,随后在2~10 h菌液pH从5.29快速下降至4.32,培养约16 h后pH趋于稳定,基本维持在4.30左右。上述结果表明,菌株GRJD005能在16 h内完成主要的生长与产酸过程,达到较高的生长量积累和较低的pH环境。如图3所示,在培养前4 h,乳酸含量积累相对缓慢;在培养4~16 h期间,乳酸含量快速上升,与菌株进入对数生长期的时间段相吻合;培养16 h后,乳酸含量达到峰值;随后至24 h乳酸含量略有下降。这一趋势表明,菌株GRJD005的产酸过程与其生长曲线基本同步,在生长稳定期初期达到最大乳酸积累量,具有良好的乳酸生产能力。
图2 菌株GRJD005的生长曲线和产酸曲线

Fig.2 Curves of growth and acid producing of strain GRJD005

图3 菌株GRJD005所产乳酸含量

Fig.3 Lactic acid content produced by strain GRJD005

2.4 菌株GRJD005的体外益生特性

2.4.1 菌株GRJD005不同温度下的生长曲线
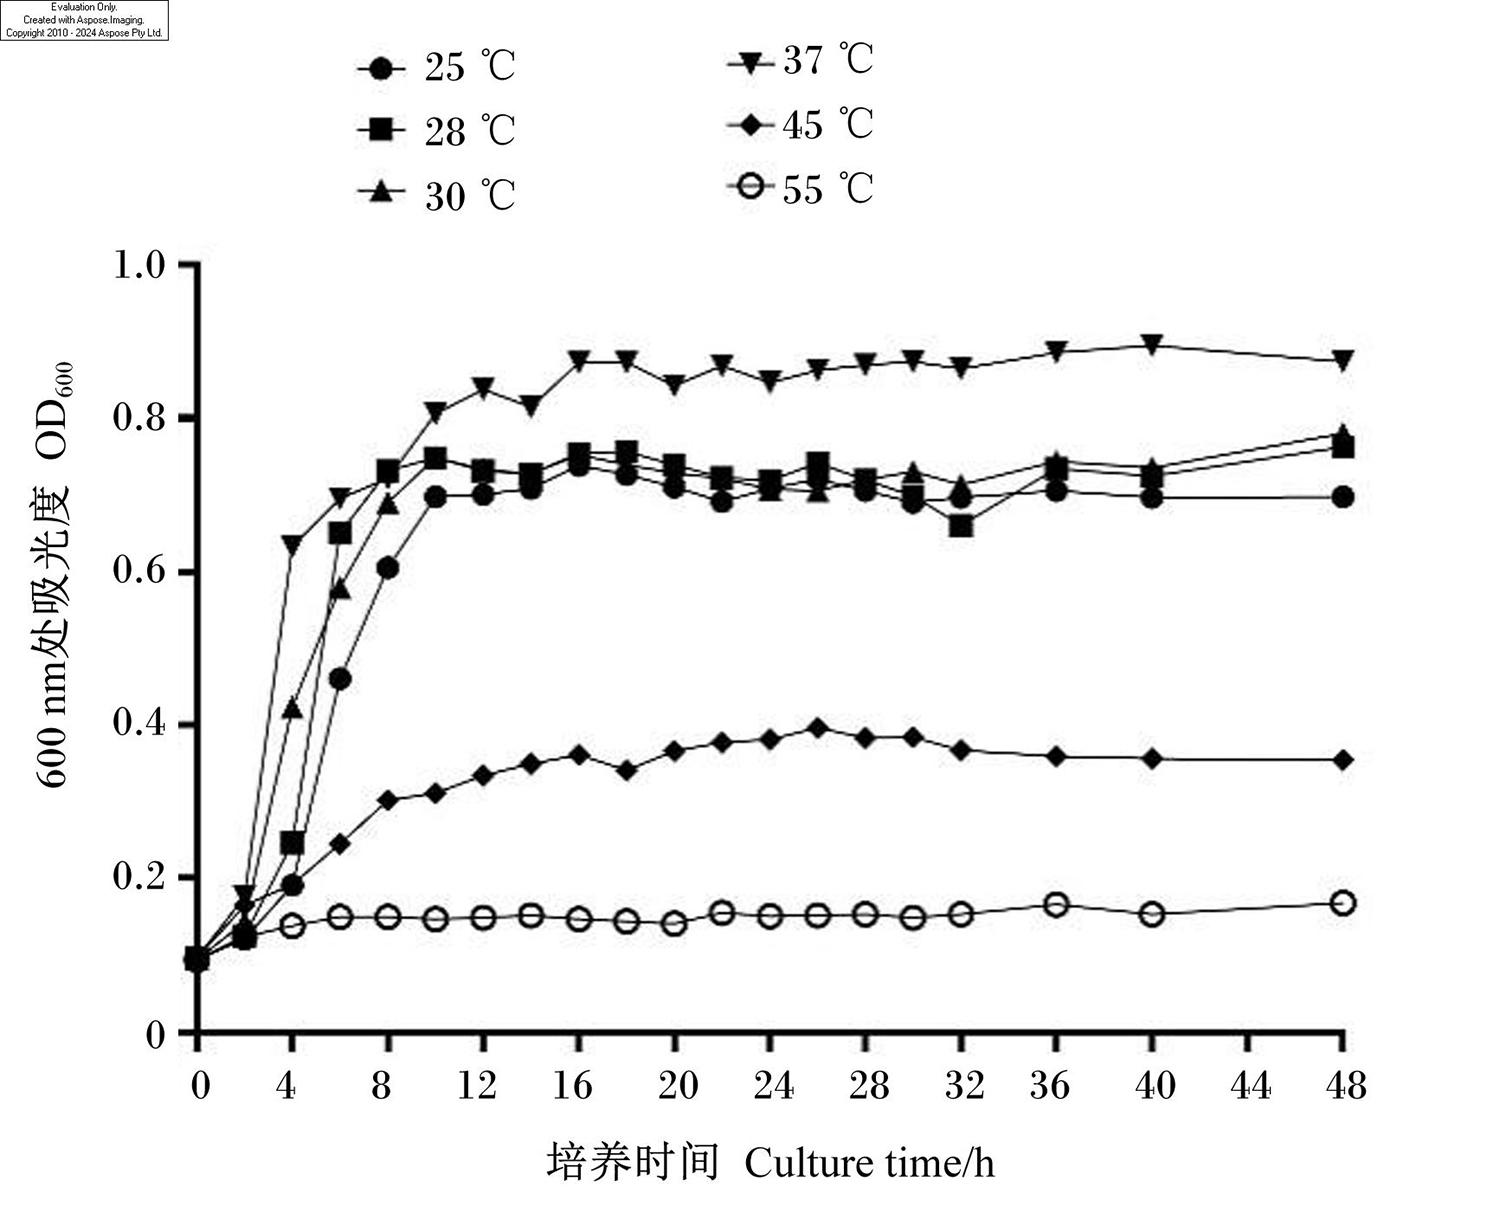
图4所示,菌株GRJD005的最适生长温度是37 ℃,在此条件下,其生长迟缓期约为2 h,随后迅速进入对数生长期,并于培养16 h后达到稳定期。当培养温度偏离最适温度时,菌株GRJD005的生长受到不同程度的影响。在25、28、30 ℃条件下,菌株GRJD005的迟缓期分别延长至6、4和3 h,且达到生长稳定期所需的总时间均长于37 ℃条件下,最终OD600值也低于37 ℃条件下。在45 ℃条件下,菌株GRJD005的生长受到明显胁迫,虽然生长迟缓期缩短至2 h,6 h后进入指数生长期,但14 h后生长停滞并开始衰亡;在55 ℃条件下,菌株GRJD005的生长完全被抑制。
图4 菌株GRJD005不同温度下的生长曲线

Fig.4 Growth curve of strain GRJD005 at different temperatures

2.4.2 菌株GRJD005对酸的耐受性

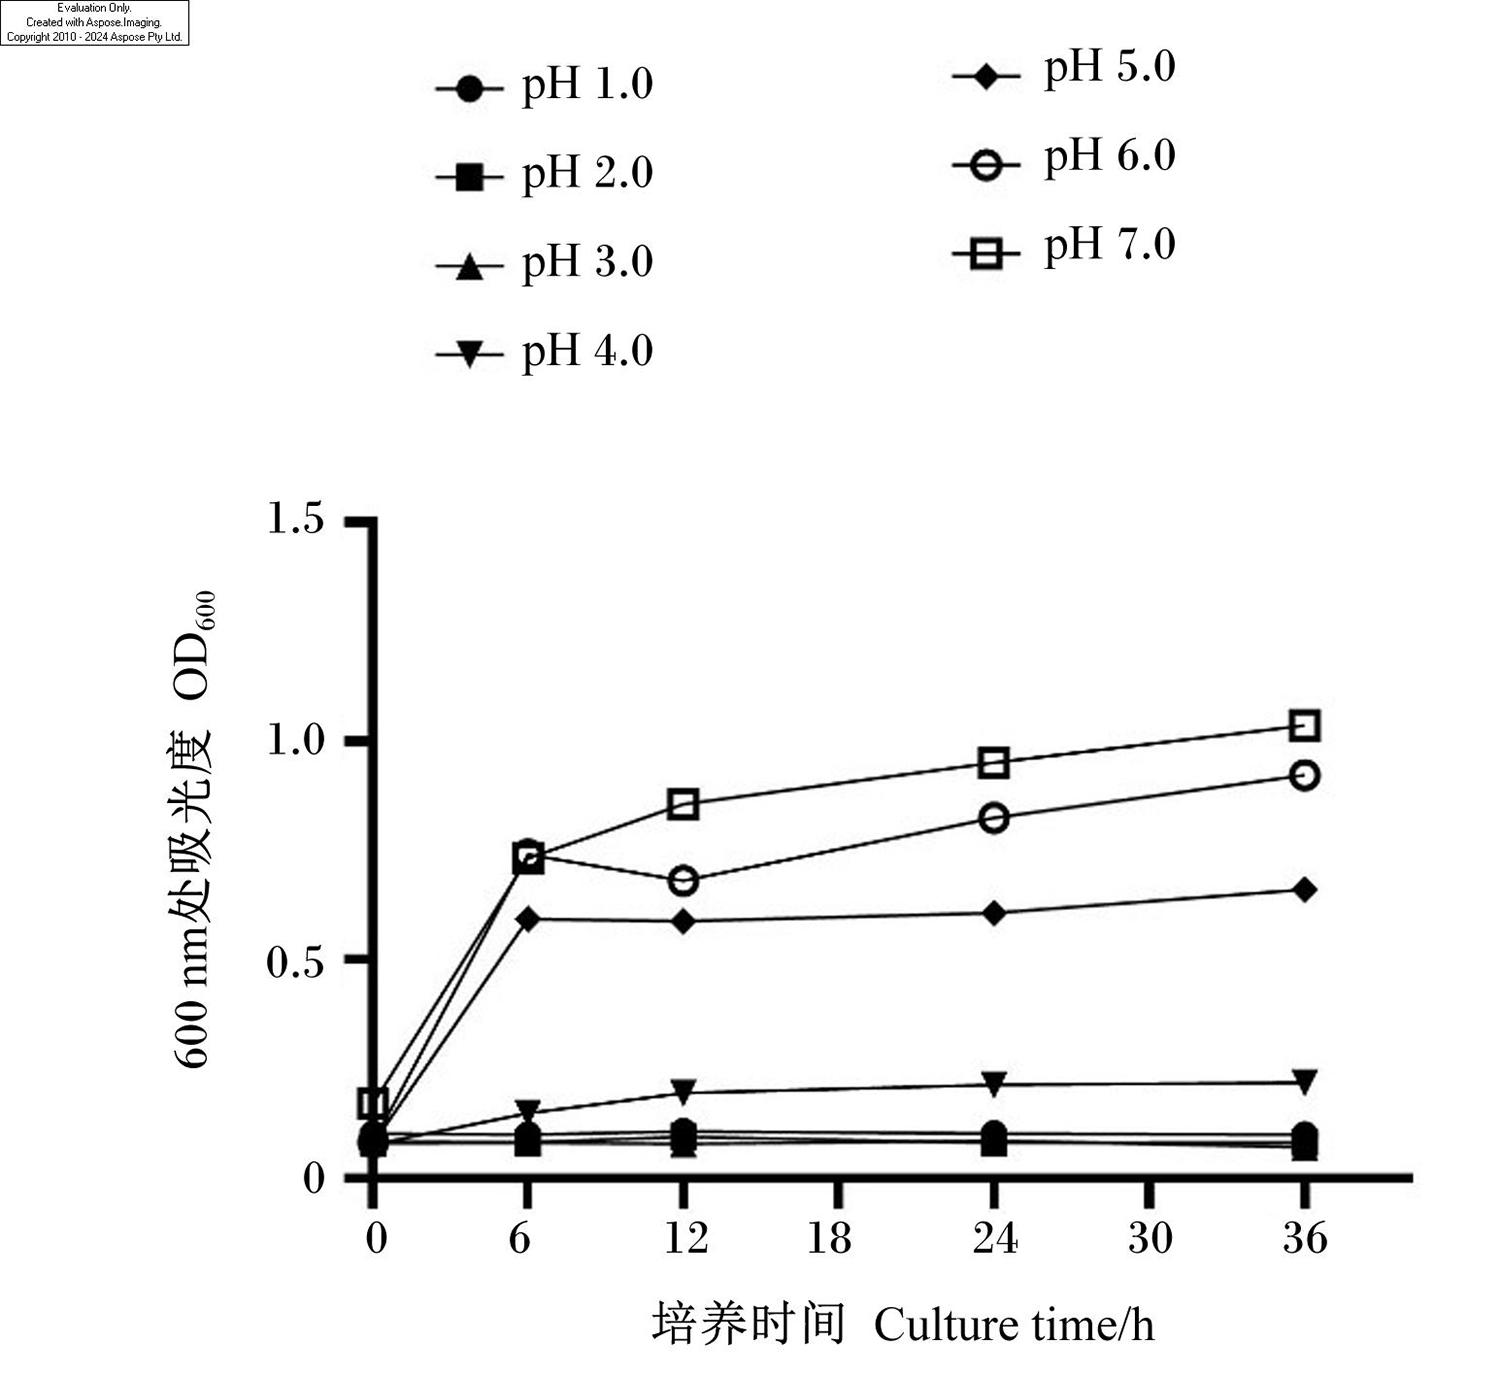
图5所示,在pH=7.0的中性条件下,菌株GRJD005表现出最快的生长速率,能够实现快速的生物量积累;在弱酸环境中(pH=5.0和6.0)时,菌株GRJD005虽然能够生长,但其生长速率和菌体密度均明显低于pH=7.0时;当培养基初始pH为4.0时,菌体延滞期延长至8 h,对数生长期缩短,并在培养约12 h 后基本停止生长;而当培养基初始pH≤3.0时,菌株GRJD005的生长被完全抑制。上述结果表明,菌株GRJD005在pH≥5.0的培养基中生长良好,对pH=4.0的培养基具有一定耐受性,而当培养基pH≤3.0时,其生长受到完全抑制。
图5 菌株GRJD005在不同pH培养基中的生长曲线

Fig.5 Growth curve of strain GRJD005 in culture with different pH

2.4.3 菌株GRJD005对胆盐的耐受性

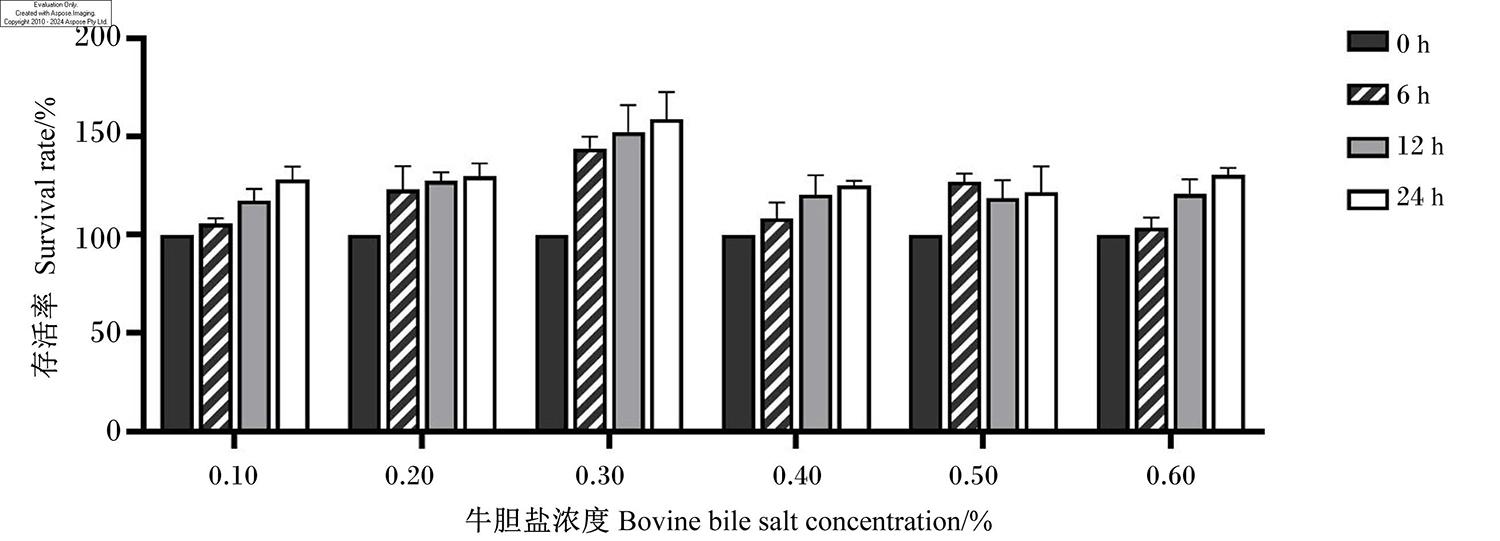
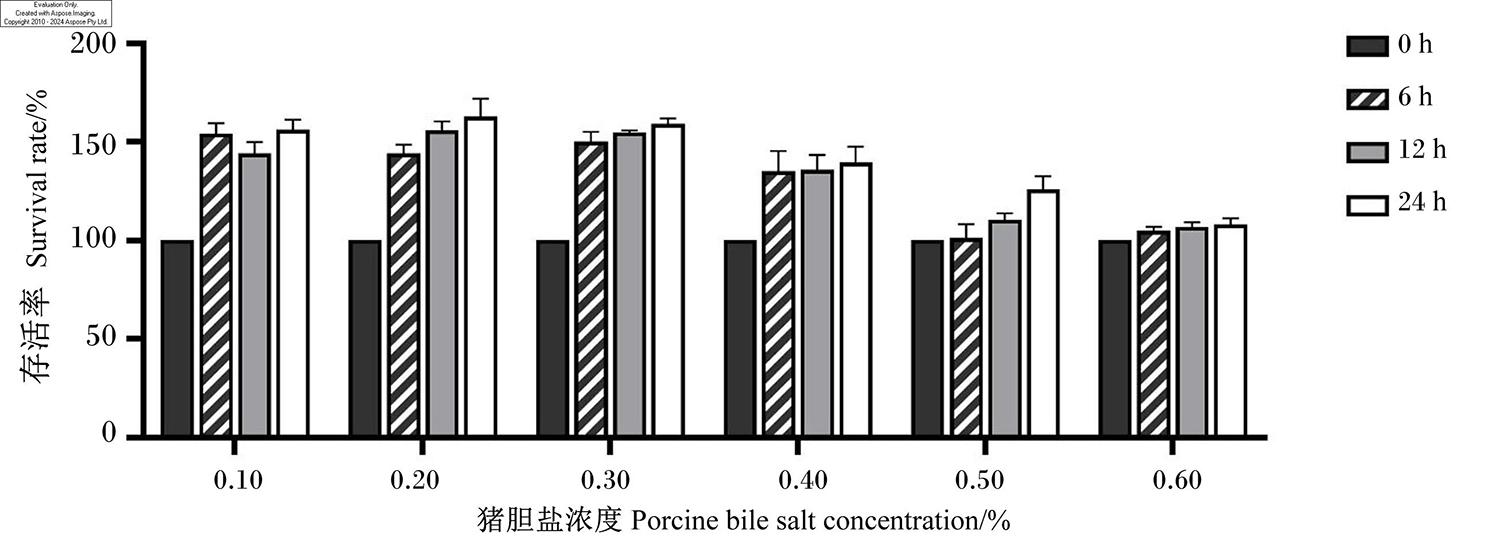
图6所示,在0.10%~0.60%牛胆盐胁迫下,菌株GRJD005表现出良好的耐受性,0.30%浓度下甚至出现促进生长现象;培养24 h后菌株在各浓度牛胆下的存活率均高于初始值(100%)。如图7所示,在猪胆盐环境中,菌株GRJD005同样表现较强的耐受性。在0.10%~0.40%浓度下,24 h存活率在139.61%~162.93%;当浓度升至0.50%和0.60%时,24 h存活率仍分别达到125.85%和108.00%。综上所述,菌株GRJD005在0.10%~0.60%的牛胆盐和猪胆盐中培养24 h后存活率均维持在100%以上,表明其具备优良的体外胆盐耐受潜力。
图6 菌株GRJD005在不同浓度牛胆盐下的存活率

Fig.6 Survival rate of strain GRJD005 under different concentrations of bovine bile salt

图7 菌株GRJD005在不同浓度猪胆盐下的存活率

Fig.7 Survival rate of strain GRJD005 under different concentrations of porcine bile salt

2.4.4 菌株GRJD005对人工胃肠液的耐受性

表2可知,菌株GRJD005在人工胃液、人工肠液、人工胃肠液中孵育3 h后的存活率分别为80.91%、96.00%、94.62%,表明菌株GRJD005对人工胃液和人工肠液均具有较好的耐受性。
表2 菌株GRJD005在人工胃液、人工肠液和人工胃肠液中的耐受性

Table 2 Tolerance of strain GRJD005 to artificial gastric fluid, artificial intestinal fluid and artificial gastric and intestinal fluid

项目
Items
耐受时间
Tolerance time/h
活菌数对数值
Logarithm of viable cell count
存活率
Survival rate/%

人工胃液 Artificial gastric fluid
0 7.44±0.06
80.91±0.01
3 6.02±0.02

人工肠液 Artificial intestinal fluid
0 6.50±0.12
96.00±0.02
3 6.24±0.10

人工胃肠液 Artificial gastric and intestinal fluid
0 5.02±0.18
94.62±0.10
3 4.75±0.45

2.4.5 菌株GRJD005的表面疏水性及自凝聚能力

表3可知,菌株GRJD005的表面疏水率和自凝聚率分别为86.61%和91.51%,表明其具有高度疏水性和高自凝聚能力。
表3 菌株GRJD005的表面疏水率及自凝聚率

Table 3 Surface hydrophobicity and self-coagulation rate of strain GRJD005%

菌株 Strain 表面疏水率 Surface hydrophobicity 自凝聚率 Self-coagulation rate
GRJD005 86.61±0.01 91.51±0.01

表面疏水性判定标准如下:表面疏水率高于50%的菌株为高度疏水,在20%~50%时为中度疏水,低于20%则为非疏水。自凝聚能力判定标准如下:自凝聚率为16%~35%、>35%~50%及50%以上时,分别判定为低、中、高自凝聚能力。

The standards for surface hydrophobicity were as follows: strains with a surface hydrophobicity rate above 50% were classified as highly hydrophobic, those between 20% and 50% as moderately hydrophobic, and those below 20% as non hydrophobic. The standards for auto aggregation ability were as follows: auto aggregation rates of 16% to 35%, >35% to 50% and above 50% were classified as low, moderate and high auto aggregation ability, respectively.

2.4.6 菌株GRJD005的抑菌活性

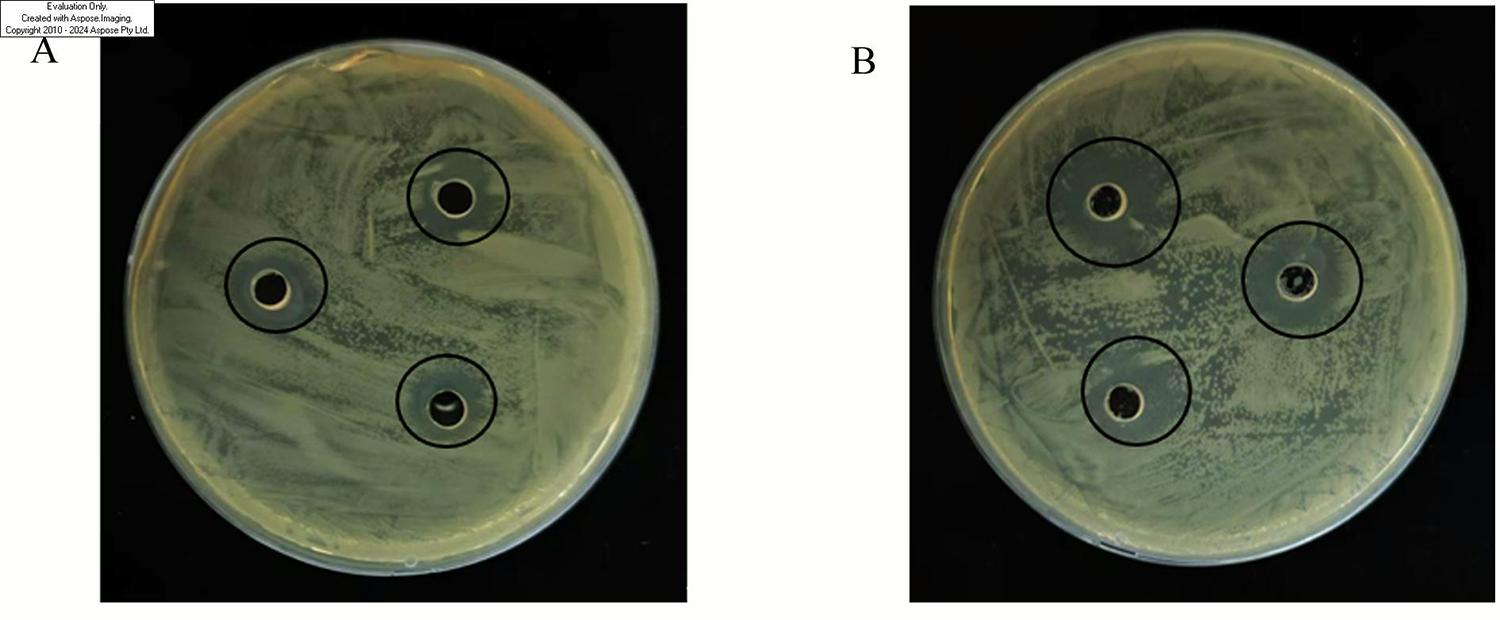
图8表4可知,菌株GRJD005对肠道沙门氏菌、金黄色葡萄球菌均产生了明显的抑菌圈,抑菌圈直径分别为14.07和14.68 mm,表明其具有中等抑菌活性。
图8 菌株GRJD005对肠道沙门氏菌(A)、金黄色葡萄球菌(B)的抑菌活性

Fig.8 Antibacterial activity of strain GRJD005 against Salmonella enterica (A) and Staphylococcus aureus (B)

表4 菌株GRJD005对肠道沙门氏菌、金黄色葡萄球菌的抑菌圈直径

Table 4 Inhibition zone diameters of strain GRJD005 against Salmonella enterica and Staphylococcus aureusmm

病原指示菌
Indicator pathogenic
bacteria
抑菌圈直径
Inhibition zone
diameter
肠道沙门氏菌 Salmonella enterica 14.07±1.16
金黄色葡萄球菌
Staphylococcus aureus
14.68±1.18

抑菌圈直径(D)判定标准为:D≥20 mm,为极敏;15 mm≤D<20 mm,为高敏;10 mm≤D<15 mm,为中敏;0 mm<D<10 mm,为低敏;D=0 mm,为无抑菌效果。The criteria for determining the diameter of the inhibition zone (D) are as follows: D≥20 mm, extremely sensitive; 15 mm≤D<20 mm, highly sensitive; 10 mm≤D<15 mm, moderately sensitive; 0 mm<D<10 mm, slightly sensitive; D=0 mm, no inhibitory effect.

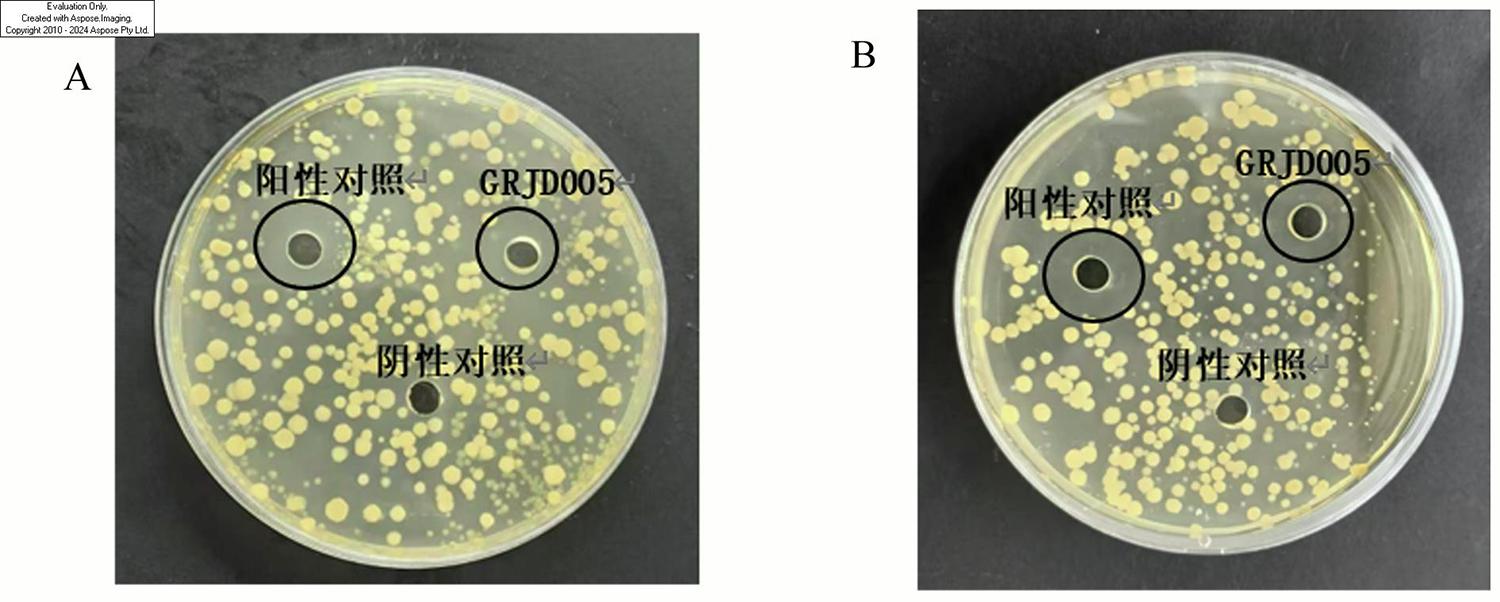
图9表5可知,将发酵液的pH调至6.0后,菌株GRJD005仍对肠道沙门氏菌和金黄色葡萄球菌产生了明显的抑菌圈,但抑菌圈直径小于阳性对照(未调节pH的原始发酵液上清),说明发酵液中除有机酸外还有其他抑菌物质存在。
图9 排酸后菌株GRJD005对肠道沙门氏菌(A)、金黄色葡萄球菌(B)的抑菌活性

Fig.9 Antibacterial activity of strain GRJD005 after acid removal against Salmonella enterica (A) and Staphylococcus aureus (B)

表5 排酸后菌株GRJD005对肠道沙门氏菌、金黄色葡萄球菌的抑菌圈直径

Table 5 Inhibition zone diameters of strain GRJD005 after acid removal against Salmonella enterica and Staphylococcus aureusmm

病原指示菌
Indicator pathogenic bacteria
抑菌圈直径 Diameter of inhibition zone
菌株GRJD005排酸后
GRJD005 after acid removal
阴性对照
Negative control
阳性对照
Positive control
肠道沙门氏菌 Salmonella enterica 16.59±0.45 0 20.77±0.40
金黄色葡萄球菌 Staphylococcus aureus 16.05±0.20 0 17.27±0.42

2.4.7 菌株GRJD005的抗生素敏感性

表6可知,菌株GRJD005对氯霉素、万古霉素、四环素、克林霉素、头孢拉定、阿奇霉素、青霉素、氨苄西林及头孢哌酮等9种常见抗生素表现出敏感,而对红霉素、庆大霉素和环丙沙星等3种常见抗生素表现出耐药。
表6 菌株GRJD005对常见抗生素的敏感性

Table 6 Sensitivity of strain GRJD005 to common antibiotics

抗生素名称
Antibiotics names
抑菌圈直径
Inhibition zone diameter/mm
敏感性
Susceptibility
氯霉素 Chloramphenicol 28.91±2.02 S
红霉素 Erythromycin - R
万古霉素 Vancomycin 22.58±1.20 S
四环素 Tetracycline 34.49±1.53 S
克林霉素 Clindamycin 26.66±1.22 S
庆大霉素 Gentamycin - R
头孢拉定 Cefradine 29.65±1.43 S
阿奇霉素 Azithromycin 18.06±0.89 S
环丙沙星 Ciprofloxacin - R
青霉素 Penicillin 34.14±2.60 S
氨苄西林 Ampicillin 32.31±0.80 S
头孢哌酮 Cefoperazone 28.38±1.49 S

-:无抑菌圈 no inhibition zone;S:敏感 susceptible;I:中介 intermediate;R:耐药 resistant。

2.4.8 菌株GRJD005的代谢特征

2.4.8.1 菌株GRJD005的非靶向代谢组学质控评价
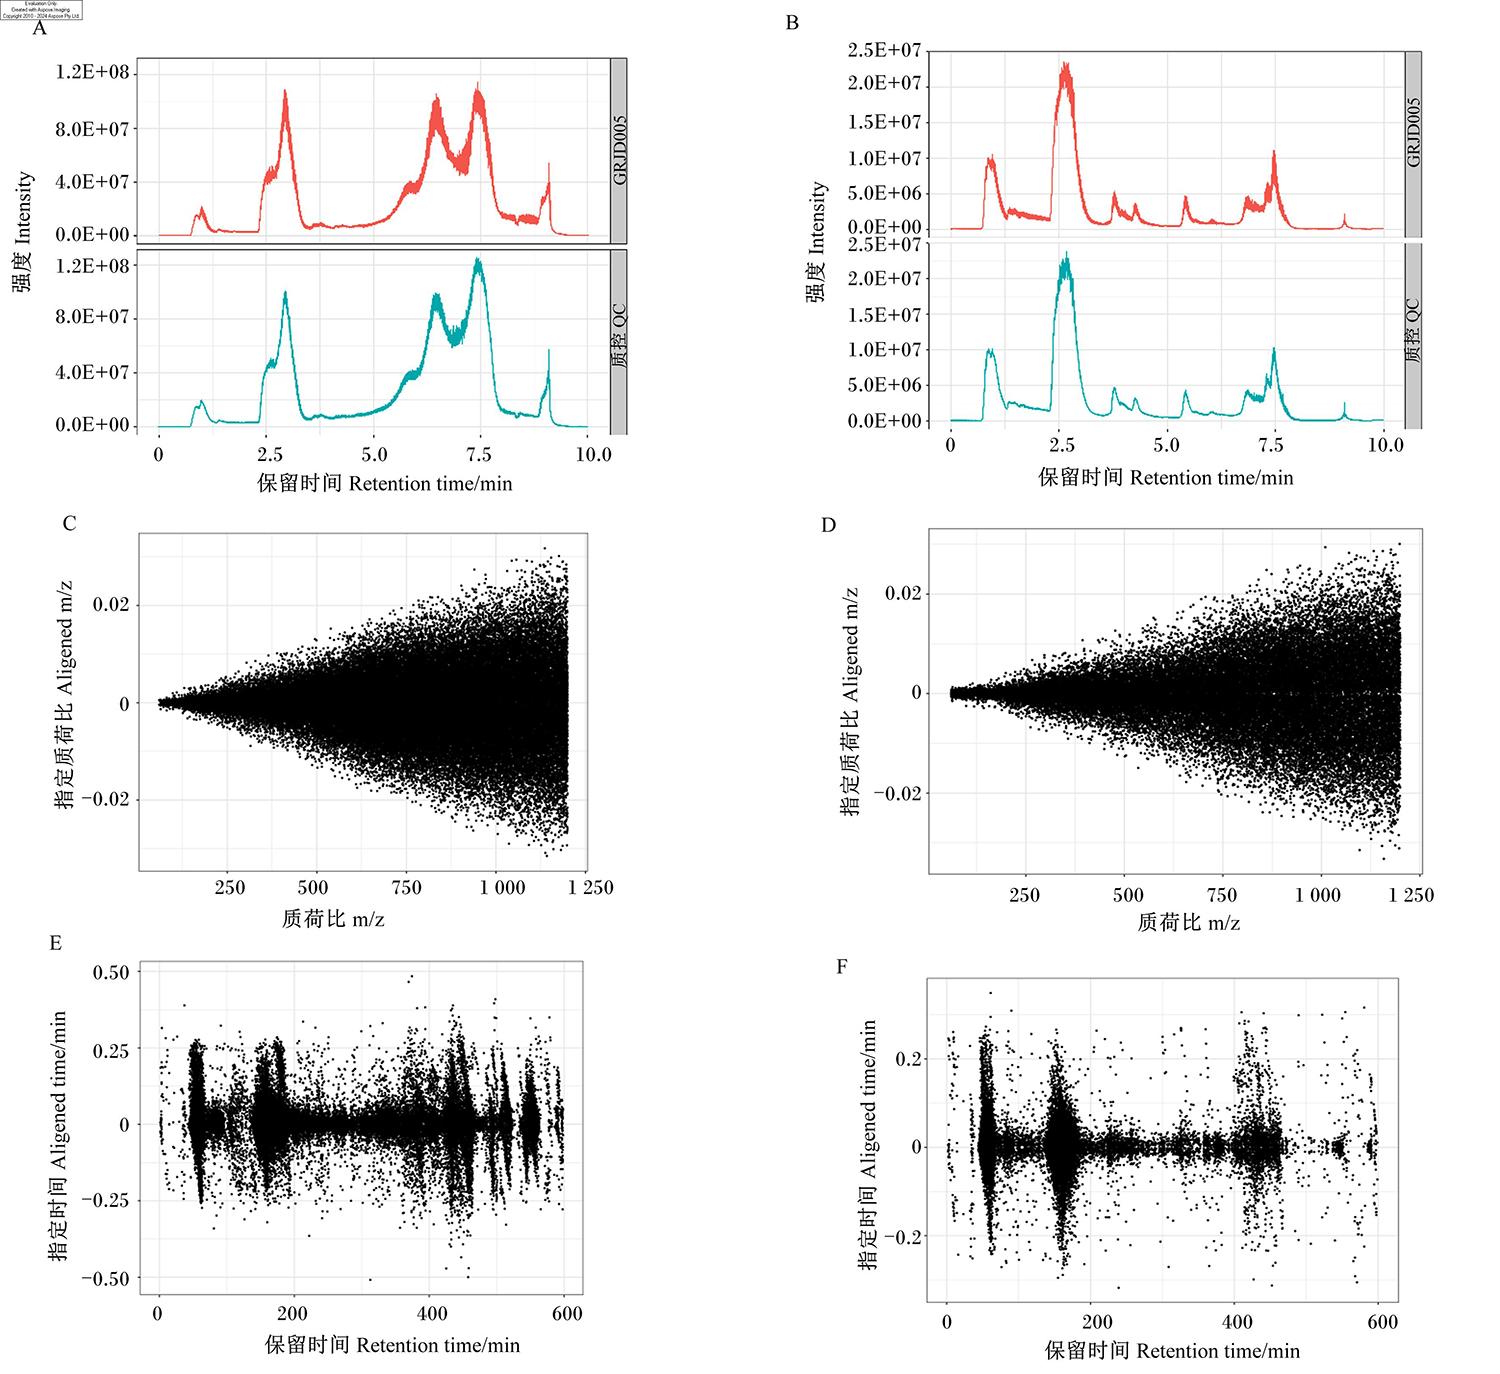
菌株GRJD005的非靶向代谢组学分析数据质量良好。如图10所示,QC样本的总离子流曲线重叠度高,保留时间漂移小于0.1 min,质荷比偏差小于1 ppm,表明仪器稳定性高,数据可靠。
图10 非靶向代谢组学数据质量评价

A:正离子模式下的总离子流图 total ion chromatogram in positive ion mode;B:负离子模式下的总离子流图 total ion chromatogram in negative ion mode;C:正离子模式下的质荷比分布图 m/z distribution in positive ion mode;D:负离子模式下的质荷比分布图 m/z distribution in negative ion mode;E:正离子模式下的保留时间分布图 retention time distribution in positive ion mode;F:负离子模式下的保留时间分布图 retention time distribution in negative ion mode。

Fig.10 Quality evaluation of non-targeted metabolomics data

2.4.8.2 菌株GRJD005的代谢物鉴定

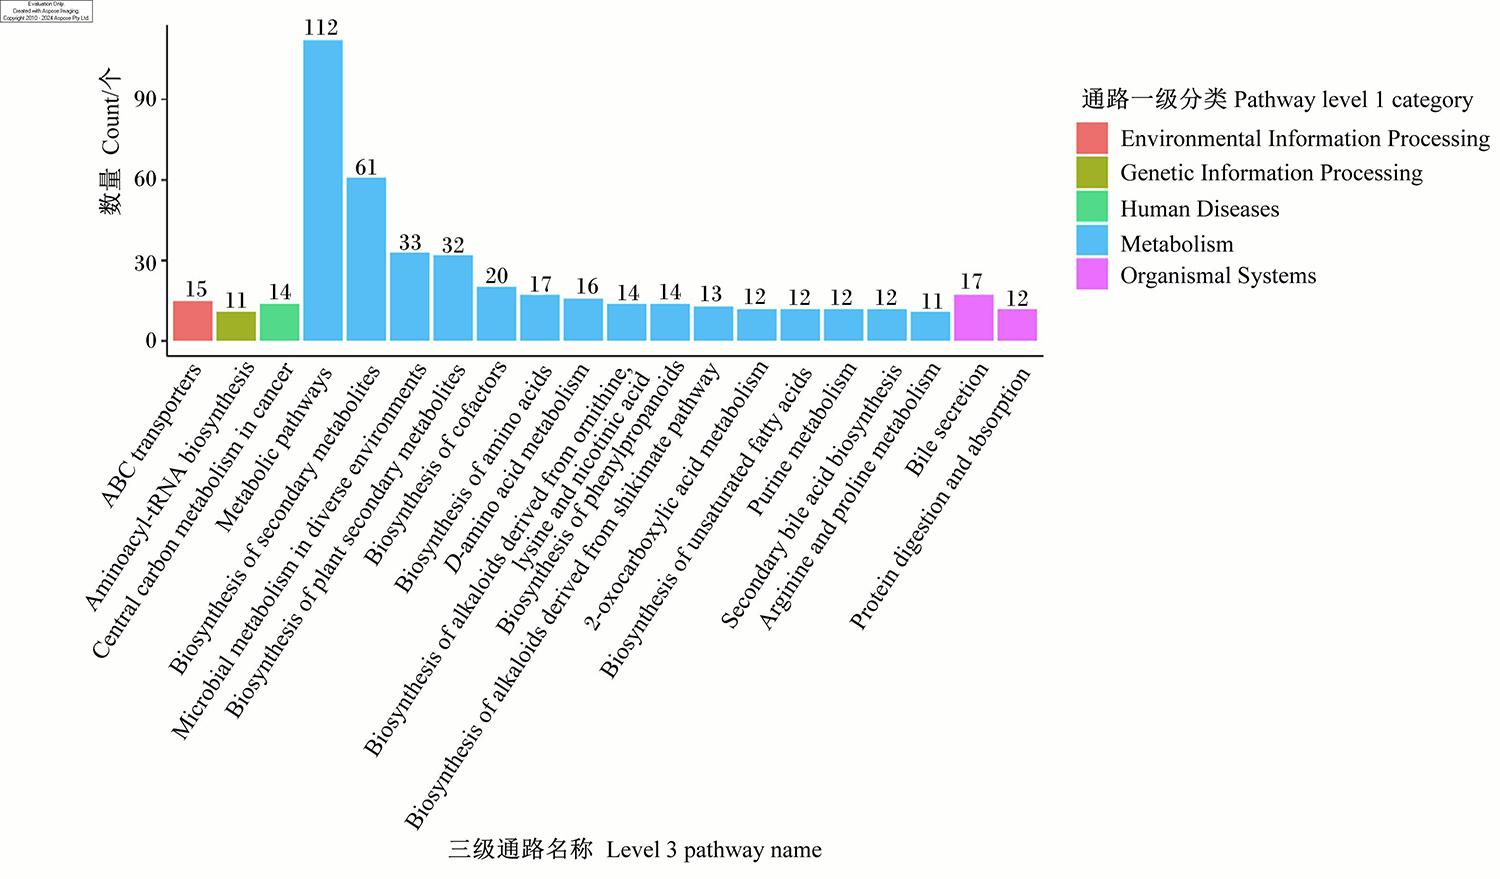
非靶向代谢组学分析共检测到74 659个代谢离子,注释到Level-1代谢物38 246个、Level-2代谢物1 021个。KEGG通路注释分析显示,这些代谢物主要归属于新陈代谢(metabolism)、生物体系统(organismal systems)和人类疾病(human diseases)等一级功能分类,其中以新陈代谢通路下的代谢物数量最多。在三级通路层面,富集代谢物数量较多的通路有代谢通路(metabolic pathways)、次生代谢物生物合成(biosynthesis of secondary metabolites)、不同环境中的微生物代谢(microbial metabolism in diverse environments)和植物次生代谢物生物合成(biosynthesis of plant secondary metabolites)等(图11)。
图11 代谢物数目排名前20的通路

Environmental Information Processing:环境信息处理;Genetic Information Processing:遗传信息处理;Human Diseases:人类疾病;Metabolism:新陈代谢;Organismal Systems:生物体系统;ABC transporters:ABC转运蛋白;Aminoacyl-tRNA biosynthesis:氨酰-tRNA生物合成;Central carbon metabolism in cancer:癌症中的中心碳代谢;Metabolic pathways:代谢通路;Biosynthesis of secondary metabolites:次生代谢物生物合成;Microbial metabolism in diverse environments:不同环境中的微生物代谢;Biosynthesis of plant secondary metabolites:植物次生代谢物生物合成;Biosynthesis of cofactors:辅因子生物合成;Biosynthesis of amino acids:氨基酸生物合成;D-amino acid metabolism:D-氨基酸代谢;Biosynthesis of alkaloids derived from ornithine, lysine and nicotinic acid:源自鸟氨酸、赖氨酸和烟酸的生物碱生物合成;Biosynthesis of phenylpropanoids:苯丙烷类生物合成;Biosynthesis of alkaloids derived from shikimate pathway:源自莽草酸途径的生物碱生物合成;2-oxocarboxylic acid metabolism:2-氧羧酸代谢;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Purine metabolism:嘌呤代谢;Secondary bile acid biosynthesis:次生胆汁酸生物合成;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Bile secretion:胆汁分泌;Protein digestion and absorption:蛋白质消化与吸收。

Fig.11 Top 20 pathways based on number of metabolites

2.4.8.3 关联益生特性的代谢通路富集特征

表7可知,次级胆汁酸生物合成(通路编号:0121)和胆汁分泌(通路编号:4976)通路中检测到胆酸、石胆酸、甘胆酸等多种胆汁酸衍生物;2-氧羧酸代谢(通路编号:1210)与次生代谢物生物合成(通路编号:1110)通路中则富集了乳酸、丙酮酸、二羟基苯丙氨酸(DOPA)等与产酸和抑菌相关的代谢物。
表7 基于代谢组学的GRJD005菌株关键益生通路分析

Table 7 Analysis of key probiotic pathways in strain GRJD005 based on metabolomics

通路编号
Pathway ID
通路名称(三级)
Pathway name (level 3)
代谢物数目
Number of metabolites
代表性代谢物
Representative metabolites
2010 ABC转运蛋白 ABC transporters 15 磷酸盐、谷氨酸、赖氨酸、L-天冬氨酸、胆碱
1210 2-氧羧酸代谢
2-oxocarboxylic acid metabolism
12 丙酮酸、谷氨酸、赖氨酸、L-天冬氨酸、柠檬酸
330 精氨酸和脯氨酸代谢
Arginine and proline metabolism
11 丙酮酸、谷氨酸、L-精氨酸、鸟氨酸、亚精胺
470 D-氨基酸代谢
D-amino acid metabolism
16 丙酮酸、谷氨酸、赖氨酸、L-天冬氨酸、D-丙氨酸
1230 氨基酸生物合成
Biosynthesis of amino acids
17 丙酮酸、谷氨酸、赖氨酸、L-天冬氨酸、
L-精氨酸、丝氨酸
4976 胆汁分泌 Bile secretion 17 胆碱、亚精胺、L-肉碱、胆汁酸、甘胆酸
121 次级胆汁酸生物合成
Secondary bile acid biosynthesis
12 胆汁酸、甘胆酸、鹅胆酸、石胆酸、去氧胆酸
1110 次生代谢物的生物合成
Biosynthesis of secondary metabolites
61 丙酮酸、谷氨酸、乳酸、二羟基苯丙氨酸、
黄嘌呤、芹黄素
4974 蛋白质消化与吸收
Protein digestion and absorption
12 谷氨酸、赖氨酸、L-天冬氨酸、
L-精氨酸、丝氨酸、组氨酸

3 讨论

3.1 菌株GRJD005胃肠道环境适应性的代谢基础

乳酸乳球菌在反刍动物胃肠道内能否成功定植直接取决于其对胃酸、胆盐及消化酶等逆境的耐受能力。Shivani等[13]报道,植物源乳酸乳球菌MKL8在人工胃液中模拟消化2 h后存活率保持在70%以上。本试验中,菌株GRJD005在人工胃液中处理3 h后存活率仍保持在80%以上,同时在pH=4.0条件下仍能生长,表现出良好的耐受能力。菌株的酸耐受性通常与其维持胞内pH稳态的能力密切相关[14]。非靶向代谢组学分析结果为这一表型提供了分子依据,菌株GRJD005在2-氧羧酸代谢与氨基酸生物合成通路中显著富集了丙酮酸、柠檬酸、谷氨酸及天冬氨酸等关键代谢物。这些有机酸与氨基酸不仅是能量代谢和蛋白质合成的底物,其积累与转化也被证实与微生物的酸信号转导系统密切相关。谷氨酸和天冬氨酸等氨基酸是谷氨酸脱氢酶系统和天冬氨酸脱羧酶系统的关键底物,可通过消耗胞内质子(H+)并将其转化为γ-氨基丁酸(GABA)或β-丙氨酸,从而直接调控胞内pH稳态[15]。而丙酮酸与柠檬酸作为能量代谢的核心枢纽,其高丰度可能为维系跨膜质子梯度的F0F1-ATP酶等质子泵提供了充足的ATP供给[16]。这表明菌株GRJD005可能通过增强上述代谢途径来调节胞内离子平衡,从而适应低pH环境。后续研究可通过靶向定量分析关键酸响应代谢物(如GABA)及测定相关基因的表达谱予以验证。
胆盐耐受性是益生菌实现胃肠道定植的关键性状。De Cjiara等[17]报道了8株乳源乳酸乳球菌在0.3%胆盐条件下处理3 h的存活率(52%~100%)呈显著菌株依赖性差异,其中菌株I1、I7和A3表现出优异的胆盐耐受性(存活率在85%~100%)。本试验中,菌株GRJD005在试验浓度范围(0.1%~0.6%)的胆盐环境中仍保持高于初始值(100%),表明其具备更强的胆盐耐受潜力。本研究分离的乳酸乳球菌GRJD005作为一类典型的乳酸菌,其在次级胆汁酸生物合成通路中显著富集了石胆酸、去氧胆酸等次级胆汁酸,并在ABC转运蛋白通路中检测到多种转运相关代谢物。这2项发现共同指向菌株GRJD005可能具备双重的耐受机制。石胆酸与去氧胆酸是初级胆汁酸(如胆酸)经胆盐水解酶(BSH)催化脱结合后的特征性产物。因此,这些次级胆汁酸的检出直接提示菌株GRJD005具有活跃的BSH活性,能够将毒性较强的初级胆汁酸转化为毒性较低的次级形式,此为乳酸菌抵抗胆盐胁迫的核心生化机制之一[18-19]。此外,ABC转运蛋白通路代谢物的富集表明菌株GRJD005可能通过增强包括胆盐在内的有害物质的外排能力以应对胁迫[20]。因此,菌株GRJD005的高胆盐耐受性可归因于其“BSH介导的胆汁酸转化”与“ABC转运蛋白介导的外排”2种代谢功能的协同。后续可通过BSH活性测定及相关转运蛋白基因的表达分析加以验证。需要说明的是,本研究采用的非靶向代谢组学为相对定性分析,所识别的代谢物(如石胆酸、去氧胆酸等)为相对丰度信息。后续需通过靶向代谢组学或酶活定量方法,进一步验证这些代谢物的绝对含量及其在耐受机制中的具体贡献。

3.2 菌株GRJD005黏附与定植相关代谢物的作用探讨

益生菌在肠道内的黏附与定植是其发挥持续益生效应的前提。Krausova等[21]报道了20株乳杆菌和双歧杆菌的表面疏水率变异范围达6.1%~87.4%,自凝聚率为21.7%~69.7%,均呈现显著的菌株特异性。本试验中,菌株GRJD005表现出高表面疏水性(表面疏水率为86.61%)和高自凝聚能力(自凝聚率为91.51%),这2个表型特征通常与细菌对肠道上皮细胞的黏附能力以及生物膜形成能力呈正相关[22]。非靶向代谢组学分析结果为此提供了可能的分子解释,菌株GRJD005在精氨酸和脯氨酸代谢通路中积累了大量的精氨酸、鸟氨酸以及多胺类物质(如亚精胺)。研究证实,多胺类物质(如亚精胺)可能通过影响细胞表面电荷与生物膜基质的形成,促进菌体聚集与黏附[23]。精氨酸与鸟氨酸是合成细胞表面黏附素及胞外多糖的关键前体,这些代谢物富集表明菌株GRJD005可能具有较强的表面因子合成能力,进而影响其与宿主肠黏膜的互作[24]。此外,菌株GRJD005在D-氨基酸代谢通路中显著富集D-丙氨酸等氨基酸,D-丙氨酸是细菌细胞壁肽聚糖合成的重要前体,其含量变化直接影响细胞壁的结构完整性及表面特性[25]。细胞壁结构的改变可能影响细菌表面疏水性及其与宿主细胞表面受体的识别与结合。因此,活跃的D-氨基酸代谢,尤其是D-丙氨酸的积累,可能是菌株GRJD005获得高表面疏水性的另一重要代谢基础。
综上可知,菌株GRJD005通过活跃的精氨酸/多胺代谢途径调控细胞表面电荷并合成黏附相关物质;同时,通过活跃的D-氨基酸代谢途径构建特定细胞壁结构,二者协同作用,共同促成其高疏水性与高自凝聚力表型。这预示着其在反刍动物肠道内可能具有更长的滞留时间和更稳定的种群规模,有助于其持续性地发挥竞争性排斥病原菌、稳定肠道微生态屏障的作用,从而可能间接促进动物的肠道健康与生长性能,但这仍需通过反刍动物肠上皮细胞模型(如肉羊或肉牛来源的原代肠上皮细胞)及体内定植模型加以验证。

3.3 菌株GRJD005抑菌活性的代谢物协同作用解析

Shao等[26]从猪源肠道分离的约氏乳杆菌L5和罗伊氏乳杆菌L8对大肠杆菌和金黄色葡萄球菌的抑菌圈直径分别达16.40和18.10 mm,且发酵上清液可显著抑制大肠杆菌的运动能力(抑制率约90%)。本试验中,菌株GRJD005对肠道沙门氏菌和金黄色葡萄球菌均表现出明显的抑菌活性,经排酸处理后其发酵液上清仍能产生清晰的抑菌圈,这证实了菌株GRJD005的抑菌活性不完全依赖有机酸,还存在非酸性的抑菌物质。菌株GRJD005在发酵过程中pH迅速下降,且其在2-氧羧酸代谢与次生代谢物生物合成通路中积累了大量的乳酸和丙酮酸等有机酸,这与其快速产酸、降低环境pH并抑制病原菌生长的能力[27]一致。此外,在次生代谢物生物合成通路中,除有机酸外,还检测到DOPA、黄嘌呤、芹黄素等具有已知生物活性的化合物。DOPA作为氧化剂和多巴胺前体,已被证实可通过产生活性氧破坏病原菌细胞膜完整性[28];黄嘌呤作为嘌呤代谢中间体,可通过干扰病原菌的嘌呤核苷酸代谢抑制其生长[29];芹黄素作为一种黄酮类化合物,可干扰病原菌能量代谢及膜功能[30]。尽管本研究尚未对这些化合物进行分离纯化与活性验证,但其在菌株GRJD005中的富集结果表明,该菌株的抑菌活性可能是其产酸能力与多种生物活性次生代谢产物协同作用的结果。后续需对DOPA、芹黄素等潜在抑菌代谢物进行分离纯化与体外抑菌活性验证,明确其抑菌贡献率,并探究其在复杂瘤胃环境中的稳定性与协同作用。

3.4 菌株GRJD005抗生素敏感性谱与代谢特征的关联分析

抗生素敏感性是评价益生菌安全性的核心指标之一。菌株GRJD005对临床常用的四环素、氯霉素等多种抗生素敏感,仅对红霉素、庆大霉素和环丙沙星表现出耐药,此谱型符合部分乳酸菌的固有耐药特征[31],初步表明其应用安全性良好。当前的非靶向代谢组学数据虽未发现与上述特定抗生素耐药性直接相关的独特代谢标志物,但在更宏观的代谢网络层面观察到菌株GRJD005具有高度活跃的基础代谢。菌株GRJD005在氨基酸生物合成通路与嘌呤代谢通路中高度活跃,大量合成包括精氨酸、赖氨酸、丝氨酸等在内的多种必需氨基酸。这些通路的活跃反映了菌株GRJD005的高合成代谢能力,是其实现快速生长及多种益生功能的基础。研究表明,当细菌的细胞壁合成(如肽聚糖交联)或蛋白质合成途径(依赖于特定氨基酸)受到抗生素抑制时,其内源性的氨基酸合成与代谢能力可能影响其对胁迫的响应和存活率[32]。因此,菌株GRJD005高度活跃的氨基酸生物合成网络,可能与其特定的抗生素敏感性谱存在关联,但这仍需要结合基因组与转录组进一步验证,并通过动物试验验证其长期饲用的安全性及对瘤胃微生物组的生态影响。

4 结论

本研究成功从和牛瘤胃液中分离并鉴定出1株乳酸乳球菌GRJD005。体外评价表明,该菌株具有良好的胃肠道耐受性、黏附定植潜力、病原菌抑制能力及安全的抗生素敏感性谱,展现出优良的体外益生潜能。非靶向代谢组学分析进一步表明,其益生表型与特定的代谢网络密切相关:活跃的次级胆汁酸生物合成与ABC转运蛋白通路构成其胆盐耐受的潜在基础;精氨酸和脯氨酸代谢与D-氨基酸代谢的富集可能为其高黏附性提供物质基础;而2-氧羧酸代谢与次生代谢物生物合成通路的富集则可能参与其产酸抑菌及生物活性物质的合成。综上可知,本研究分离得到的牛瘤胃源乳酸乳球菌GRJD005是一株具有优良体外益生特性的反刍动物潜在益生菌候选菌株,其独特的“表型组-代谢组”关联特征可为从系统生物学角度理解和筛选益生菌提供新视角。
[1]
BAN Y J, GUAN L L. Implication and challenges of direct-fed microbial supplementation to improve ruminant production and health[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):109.

[2]
李俊峰, 廖凯威, 李彪, 等. 益生菌在反刍动物中的应用[J]. 中国饲料, 2024(17):197-202.

LI J F, LIAO K W, LI B, et al. Application of probiotics in ruminants[J]. China Feed, 2024(17):197-202. (in Chinese)

[3]
郭欣雨. 中国传统发酵乳制品来源乳酸乳球菌的筛选及发酵特性分析[D]. 硕士学位论文. 无锡: 江南大学, 2025.

GUO X Y. Screening and fermentation characteristics analysis of Lactococcus lactis strains from Chinese traditional fermented dairy products[D]. Master’s Thesis. Wuxi: Jiangnan University, 2025. (in Chinese)

[4]
朱荻, 陈莎男, 梅晓宏, 等. 提高益生菌耐加工贮藏稳定性和体内存活率的递送系统研究进展[J]. 食品科学, 2023, 44(21):1-13.

ZHU D, CHEN S N, MEI X H, et al. Advances in the delivery systems for improving the processing stability,storage stability and in vivo survival rate of probiotics[J]. Food Science, 2023, 44(21):1-13. (in Chinese)

[5]
FIOCCO D, LONGO A, ARENA M P, et al. How probiotics face food stress:they get by with a little help[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(9):1552-1580.

[6]
JOSHI H, BERNARD B, LEMLEY C, et al. Unveiling the rumen-microbiome-brain circuit:a unique dimension of gut-brain axis in ruminants[J]. Journal of Animal Science and Biotechnology, 2025, 16(1):159.

[7]
MALDONADO-GÓMEZ M X, MARTÍNEZ I, BOTTACINI F, et al. Stable engraftment of Bifidobacterium longum AH1206 in the human gut depends on individualized features of the resident microbiome[J]. Cell Host & Microbe, 2016, 20(4):515-526.

[8]
DOUILLARD F P, RIBBERA A, JÄRVINEN H M, et al. Comparative genomic and functional analysis of Lactobacillus casei and Lactobacillus rhamnosus strains marketed as probiotics[J]. Applied and Environment Microbiology, 2013, 79(6):1923-1933.

[9]
许翊冉, 毛森, 于滨, 等. 丁酸梭菌、乳酸菌在幼龄反刍动物生产中的应用[J]. 饲料工业, 2025, 46(9):50-55.

XU Y R, MAO S, YU B, et al. Application of Clostridium butyricum and lactic acid bacteria in production of young ruminant animals[J]. Feed Industry, 2025, 46(9):50-55. (in Chinese)

[10]
东秀珠, 蔡妙英. 常见细菌系统鉴定手册[M]. 北京: 科学出版社, 2001:289-294.

DONG X Z, CAI M Y. Common bacterial systematic identification manual[M]. Beijing: Science Press, 2001:289-294. (in Chinese)

[11]
国家药典委员会. 中华人民共和国药典[M]. 3版. 北京: 中国医药科技出版社, 2020.

Chinese Pharmacopoeia Commission. Chinese pharmacopoeia[M]. 3rd ed. Beijing: China Medical Science and Technology Press, 2020. (in Chinese)

[12]
刘倩, 孙明远, 钟荣珍. 2株瘤胃源酿酒酵母的分离鉴定及其代谢特征与体外益生潜能研究[J]. 动物营养学报, 2026, 38(7):5483-5505.

LIU Q, SUN M Y, ZHONG R Z. Isolation,identification,metabolic characteristics,and in vitro probiotic potential of two rumen-derived Saccharomyces cerevisiae strains[J]. Chinese Journal of Animal Nutrition, 2026, 38(7):5483-5505. (in Chinese)

[13]
SHIVANI T M, SATHIAVELU M. Probiotic evaluation,adherence capability and safety assessment of Lactococcus lactis strain isolated from an important herb “Murraya koenigii”[J]. Scientific Reports, 2024, 14(1):15565.

[14]
林龙镇, 邹卫玲, 李安章, 等. 产酸、耐酸乳酸菌的分离鉴定及益生特性[J]. 华南农业大学学报, 2018, 39(2):95-102.

LIN L Z, ZOU W L, LI A Z, et al. Isolation,identification and probiotic characteristics of acid-producing and acid-resistant Lactobacillus strains[J]. Journal of South China Agricultural University, 2018, 39(2):95-102. (in Chinese)

[15]
ATASOY M, BARTKOVA S, ÇETECIOĞLU-GÜROL Z, et al. Methods for studying microbial acid stress responses:from molecules to populations[J]. FEMS Microbiology Reviews, 2024, 48(5):fuae015.

[16]
ZHU Z M, YANG P S, YANG J H, et al. Comparative transcriptome analysis reveals the contribution of membrane transporters to acid tolerance in Lactococcus lactis[J]. Journal of Biotechnology, 2022, 357:9-17.

[17]
DE CJIARA I, MARASCO R, DELLA GALA M, et al. Probiotic properties of Lactococcus lactis strains isolated from natural whey starter cultures[J]. Foods, 2024, 13(6):957.

[18]
CHAND D, PANIGRAHI P, VARSHNEY N, et al. Structure and function of a highly active bile salt hydrolase (BSH) from Enterococcus faecalis and post-translational processing of BSH enzymes[J]. Biochimica et Biophysica Acta:Proteins and Proteomics, 2018, 1866(4):507-518.

[19]
LIU Y Y, KUANG W J, LI M, et al. Cholesterol-lowering mechanism of Lactobacillus bile salt hydrolase through regulation of Bifidobacterium pseudolongum in the gut microbiota[J]. Nutrients, 2025, 17(18):3019.

[20]
HU Y X, FAN Z X, SUN Q, et al. Synergistic effects of salt-tolerant lactic acid bacteria on flavour profiles,bioactive compounds and microbial communities in traditional earthen-jar fermented fruit radish paocai[J]. Food Research International, 2026, 223(Pt 2):117892.

[21]
KRAUSOVA G, HYRSLOVA I, HYNSTOVA I. In vitro evaluation of adhesion capacity,hydrophobicity,and auto-aggregation of newly isolated potential probiotic strains[J]. Fermentation, 2019, 5(4):100.

[22]
ALP D, KULEAŞAN H. Adhesion mechanisms of lactic acid bacteria:conventional and novel approaches for testing[J]. World Journal of Microbiology and Biotechnology, 2019, 35(10):156.

[23]
李存杰. 高黏附乳酸菌的筛选及益生特性挖掘[D]. 硕士学位论文. 济南: 山东大学, 2024.

LI C J.Screening of high adhesion lactic acid bacteria and characterization of probiotic properties[D].Master’s Thesis. Ji’nan: Shandong University, 2024. (in Chinese)

[24]
SAWADA K, YAMADA T. A novel glycerol-containing exopolysaccharide from the ropy strain Lactiplantibacillus plantarum KY5-ES5 and its impact on medium viscosity[J]. Scientific Reports, 2025, 16(1):357.

[25]
NANDY S, TEHRANI A F, HUNT-SERRACIN A C, et al. Molecular interplay between peptidoglycan integrity and outer membrane asymmetry in maintaining cell envelope homeostasis[J]. Journal of Bacteriology, 2025, 207(10):e0033125.

[26]
SHAO Y, WU X Y, YU Z R, et al. Gut microbiome analysis and screening of lactic acid bacteria with probiotic potential in Anhui swine[J]. Animals, 2023, 13(24):3812.

[27]
DARBANDI A, ASADI A, MAHDIZADE ARI M, et al. Bacteriocins:properties and potential use as antimicrobials[J]. Journal of Clinical Laboratory Analysis, 2022, 36(1):e24093.

[28]
崔姣姣, 罗尚文, 董世辉. 具有抗菌活性的核糖体肽类天然产物[J]. 中国抗生素杂志, 2025, 50(9):1090-1115.

CUI J J, LUO S W, DONG S H. Ribosomally synthesized and post-translationally modified peptides with antimicrobial activities[J]. Chinese Journal of Antibiotics, 2025, 50(9):1090-1115. (in Chinese)

[29]
FURUHASHI M. New insights into purine metabolism in metabolic diseases:role of xanthine oxidoreductase activity[J]. American Journal of Physiology-Endocrinology and Metabolism, 2020, 319(5):E827-E834.

[30]
许贞, 孔建强. 黄酮芹糖苷类化合物及其生物合成研究进展[J]. 生物工程学报, 2025, 41(11):4138-4156.

XU Z, KONG J Q. Research progress in flavonoid apiosides from plants and their biosynthetic pathways[J]. Chinese Journal of Biotechnology, 2025, 41(11):4138-4156. (in Chinese)

[31]
杨雪娇. 一株乳酸乳球菌的分离鉴定和安全性评估及对两种淡水鱼生物效应的分子机理研究[D]. 硕士学位论文. 昆明: 昆明理工大学, 2021.

YANG X J. Isolation,identification and safety assessment of a strain of Lactococcus lactis and molecular mechanism of biological effects on two species of freshwater fish[D]. Master’s Thesis. Kunming: Kunming University of Science and Technology, 2021. (in Chinese)

[32]
吴迎. 抗生素对动物代谢的影响及替抗益生菌的筛选与抗感染功效研究[D]. 博士学位论文. 兰州: 兰州大学, 2024.

WU Y. Exploring the impact of antibiotics on animal metabolism and the screening and anti-infective efficacy of probiotics as alternatives[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2024. (in Chinese)

文章导航

/