研究论文

一株荷斯坦犊牛源罗伊氏黏液乳杆菌的分离鉴定以及益生特性和全基因组分析

  • 苏晓龙 , 1 ,
  • 文硕 1, * ,
  • 邹少东 2 ,
  • 王苗 1 ,
  • 陈源 1 ,
  • 沙志行 1 ,
  • 孙鑫虎 1 ,
  • 徐晓锋 1 ,
  • 马玉林 , 1, **
展开
  • 1 宁夏大学动物科技学院, 银川 750021
  • 2 宁夏回族自治区畜牧工作站, 银川 750021
**马玉林,副教授,硕士生导师,E-mail:

*同等贡献作者

苏晓龙(2000—),女,甘肃庄浪人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 田艳明

收稿日期: 2026-04-24

  网络出版日期: 2026-08-13

基金资助

宁夏自然科学基金联合基金(2025AAC050020)

宁夏回族自治区重点研发计划项目(2024BBF01006)

大学生创新创业训练计划项目(S202510749064)

Isolation, Identification, Probiotic Properties and Whole-Genome Analysis of a Limosilactobacillus reuteri Strain from Holstein Calves

  • SU Xiaolong , 1 ,
  • WEN Shuo 1 ,
  • ZOU Shaodong 2 ,
  • WANG Miao 1 ,
  • CHEN Yuan 1 ,
  • SHA Zhihang 1 ,
  • SUN Xinhu 1 ,
  • XU Xiaofeng 1 ,
  • MA Yulin , 1, **
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Animal Husbandry Workstation of Ningxia Hui Autonomous Region, Yinchuan 750021, China
**associate professor, E-mail:

*Contributed equally

Received date: 2026-04-24

  Online published: 2026-08-13

摘要

本试验从健康荷斯坦犊牛粪便中分离出一株罗伊氏黏液乳杆菌,并对其益生特性和全基因组进行分析,以评价其作为奶牛益生菌的应用潜力。采集30头7日龄健康荷斯坦犊牛新鲜粪便,采用传统微生物分离纯化技术对乳酸菌进行分离筛选,采用分子生物学技术进行鉴定,同时对其生长特性、耐受性、抑菌活性、抗生素敏感性、溶血性及动物安全性进行评估,并进行全基因组测序分析。结果表明:1)成功分离出一株罗伊氏黏液乳杆菌,命名为罗伊氏黏液乳杆菌KY-1;2)该菌株接种4 h后进入对数生长期,14 h进入稳定期,24 h时使MRS肉汤pH降至4.0以下;3)该菌株在pH为4.5~5.0时存活率大于75.00%,在人工胃液中的存活率为25.65%,在人工肠液中的相对存活率为120.18%;4)该菌株能够抑制大肠杆菌、鼠伤寒沙门氏菌和金黄色葡萄球菌的生长,无溶血活性,对青霉素、氨苄西林、头孢曲松、四环素、红霉素和氯霉素敏感;5)该菌株全基因组大小为2.38 Mb,GC含量为38.23%,注释到大量与碳水化合物、氨基酸、维生素代谢及抑菌物质合成相关基因。综上所述,罗伊氏黏液乳杆菌KY-1益生特性优良、安全性高,可作为奶牛犊牛益生菌候选菌株。

本文引用格式

苏晓龙 , 文硕 , 邹少东 , 王苗 , 陈源 , 沙志行 , 孙鑫虎 , 徐晓锋 , 马玉林 . 一株荷斯坦犊牛源罗伊氏黏液乳杆菌的分离鉴定以及益生特性和全基因组分析[J]. 动物营养学报, 2026 , 38(8) : 6246 -6256 . DOI: 10.12418/CJAN2026.499

Abstract

In this study, a strain of Limosilactobacillus reuteri was isolated from the feces of healthy Holstein calves, and its probiotic properties and whole-genome were analyzed to evaluate its potential as a probiotic for dairy cattle. Fresh fecal samples were collected from 30 healthy 7-day-old Holstein calves. Lactic acid bacteria were isolated and screened using traditional microbial isolation and purification techniques, and identified by molecular biology methods. Meanwhile, its growth characteristics, tolerance, antibacterial activity, antibiotic susceptibility, hemolysis and in vivo safety were evaluated, and whole-genome sequencing analysis was performed. The results showed as follows: 1) a strain of Limosilactobacillus reuteri was successfully isolated and designated as Limosilactobacillus reuteri KY-1; 2) the strain entered the logarithmic growth phase at 4 h of inoculation, reached the stationary phase at 14 h, and decreased the pH of MRS broth to below 4.0 at 24 h; 3) the strain exhibited a survival rate of >75.00% at pH 4.5 to 5.0, a survival rate of 25.65% in artificial gastric fluid, and a relative survival rate of 120.18% in artificial intestinal fluid; 4) the strain inhibited the growth of Escherichia coli, Salmonella Typhimurium, and Staphylococcus aureus, showed no hemolytic activity, and was susceptible to penicillin, ampicillin, ceftriaxone, tetracycline, erythromycin and chloramphenicol; 5) the whole-genome size of the strain was 2.38 Mb with a GC content of 38.23%, and a large number of genes involved in carbohydrate, amino acid and vitamin metabolism as well as antimicrobial substance synthesis were annotated. In conclusion, Limosilactobacillus reuteri KY-1 exhibits excellent probiotic properties and a high safety profile, and can be considered a candidate probiotic strain for dairy calves.

犊牛在养殖过程中易受断奶应激、肠道屏障损伤及肠道菌群失调等问题的影响,严重制约其生产性能的提升[1]。与此同时,抗生素的限制使用更凸显了益生菌替代方案的迫切性[2]。在众多益生菌中,乳酸菌作为革兰氏阳性细菌的重要类群,能利用碳水化合物产生大量乳酸,从而调节肠道微生态平衡,抑制有害菌增殖,并改善营养物质消化[3]。罗伊氏黏液乳杆菌(Limosilactobacillus reuteri)能产生罗伊氏菌素[4],不仅可以调节肠道菌群平衡[5],增强黏膜屏障功能,以及改善宿主代谢;还可以通过抑制致病性大肠杆菌、沙门氏菌等有害菌生长[6],从而减少抗生素使用,并降低养殖环境污染物排放,契合绿色养殖发展的趋势。
菌株的来源特异性和功能差异性是影响益生菌应用效果的关键因素[7]。与异源益生菌相比,同源益生菌定植能力更强,能更快适应肠道内环境,且对宿主的益生作用也优于异源性菌群[8]。目前,国内已从母乳、婴儿粪便、发酵乳制品中分离出多株罗伊氏黏液乳杆菌,但针对荷斯坦犊牛肠道益生菌的研究仍处于起步阶段。鉴于此,本试验以荷斯坦犊牛为试验对象,采用传统微生物分离纯化技术对其粪便乳酸菌进行分离筛选,并通过测定生长曲线、产酸曲线、耐酸性、耐胆盐性、耐人工胃肠液能力、抑菌活性、抗生素敏感性及溶血性等指标,结合全基因组测序与功能注释,系统评价其益生特性和安全性,以期为研制奶牛功能性益生菌饲料添加剂提供优质菌种资源。

1 材料与方法

1.1 伦理声明

本研究经武汉华联科生物技术有限公司伦理委员会审查批准(批准编号:LK-20250428-001)。

1.2 试验材料

1.2.1 样品采集

采集来自宁夏某规模化奶牛养殖场的30头7日龄健康荷斯坦犊牛新鲜粪便,用无菌离心管收集,冰盒转运,2 h内接种至MRS琼脂培养基。

1.2.2 主要试剂和仪器

主要试剂:MRS肉汤、MRS琼脂、LB肉汤、LB琼脂及哥伦比亚血琼脂培养基均购自青岛高科技工业园海博生物技术有限公司;细菌基因组DNA提取试剂盒购自武汉赛维尔生物科技有限公司;牛胆盐购自上海麦克林生化科技股份有限公司;药敏片购自舜友(上海)生物技术有限公司;胃蛋白酶和胰蛋白酶购自翌圣生物科技(上海)股份有限公司。病原指示菌中,大肠杆菌和金黄色葡萄球菌由宁夏大学动物科技学院王桂琴教授馈赠,鼠伤寒沙门氏菌购自上海北诺生物科技有限公司。
主要仪器:台式空气浴恒温摇床(YCT-20A,上海捷呈实验仪器有限公司),高速离心机(H1650,湖南湘仪实验室仪器开发有限公司),超净工作台[Heraguard ECO,赛默飞世尔科技(中国)有限公司],小型厌氧培养箱(YQX-Ⅱ,上海川宏实验仪器有限公司)。

1.3 菌株分离和纯化

参考李元元等[9]的方法,称取1.0 g粪便样品,加入9 mL无菌生理盐水,充分振荡混匀,制备菌悬液。采用10倍梯度稀释法,稀释至10-8,分别吸取10-6、10-7、10-8稀释度菌液100 μL,均匀涂布于MRS固体培养基上,37 ℃厌氧培养24 h。挑取形态典型的单菌落,经反复划线纯化3次,获得纯培养物。将纯化菌液与40%甘油按1∶1(体积比)混合,-80 ℃保存。

1.4 菌株生物学特性分析

1.4.1 菌株分子生物学鉴定

收集活化菌体,提取基因组DNA,采用16S rRNA基因通用引物进行PCR扩增,并送上海美吉生物医药科技有限公司进行测序。将测序结果在美国国家生物技术信息中心(NCBI)数据库进行比对,采用MEGA 10.0构建系统发育树,确定菌株分类地位。

1.4.2 全基因组测序和分析

采用Illumina NovaSeq平台测序,SPAdes组装,NCBI原核生物基因组注释管道(PGAP)预测基因,并与蛋白质同源基团簇(COG)、基因本体(GO)和京都基因与基因组百科全书(KEGG)数据库进行比对,分析基因功能。

1.4.3 生长和产酸曲线测定

将活化菌株以1%接种量接入MRS肉汤,37 ℃静置培养36 h,每2 h取样测定600 nm吸光度(OD600)值和pH,重复3次,绘制生长和产酸曲线。

1.4.4 耐受性测定

耐胆盐性:用牛胆盐配制含0.3%胆盐的MRS肉汤,121 ℃高压灭菌20 min,冷却备用;将待测菌液以5%接种量接种至胆盐溶液中[10],以普通MRS肉汤培养基为对照,37 ℃恒温培养6 h,采用平板计数法测定活菌数,计算存活率。
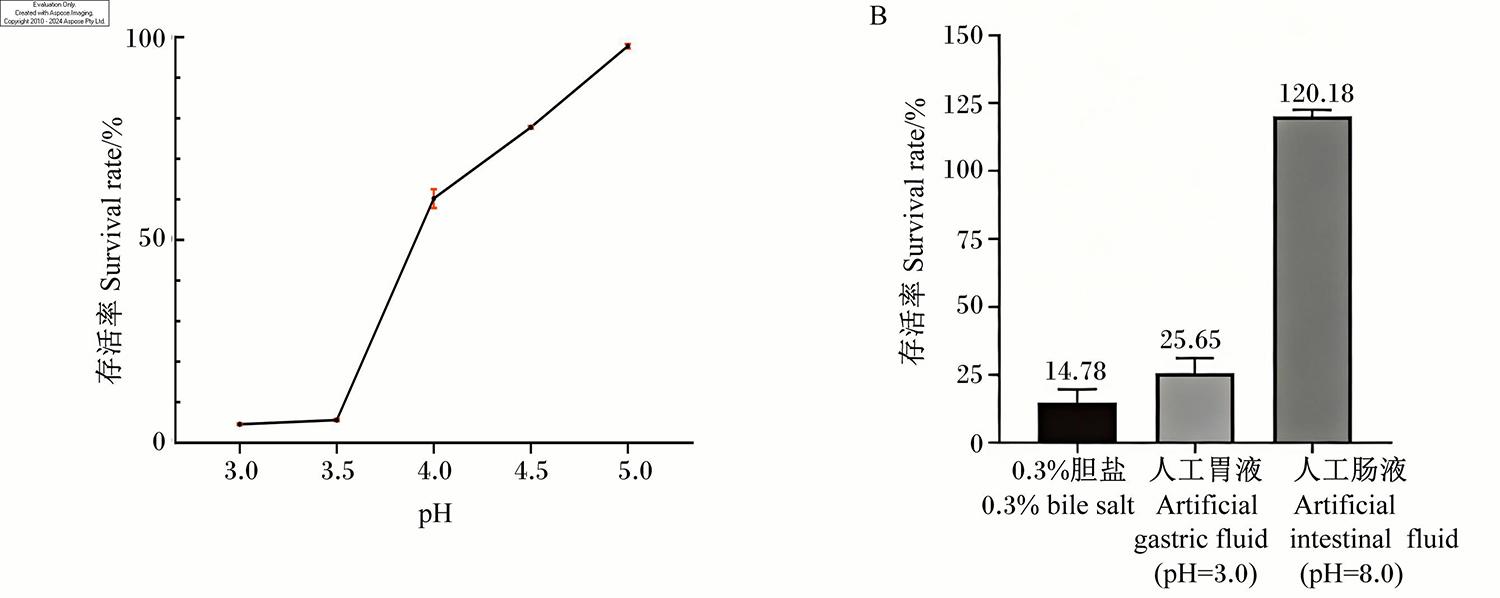
耐酸性:待测菌株活化培养后,分别将其接入pH=3.0、3.5、4.0、4.5和5.0的MRS肉汤培养基中,于37 ℃恒温培养3 h,以普通MRS肉汤培养基为对照[11],测定OD600值,计算存活率。
耐人工胃肠液能力:人工胃液pH=3.0,含1 mg/mL胃蛋白酶;人工肠液pH=8.0,含1 mg/mL胰蛋白酶,37 ℃培养 4 h,采用平板计数法测定活菌数,计算存活率。

1.4.5 抑菌活性测定

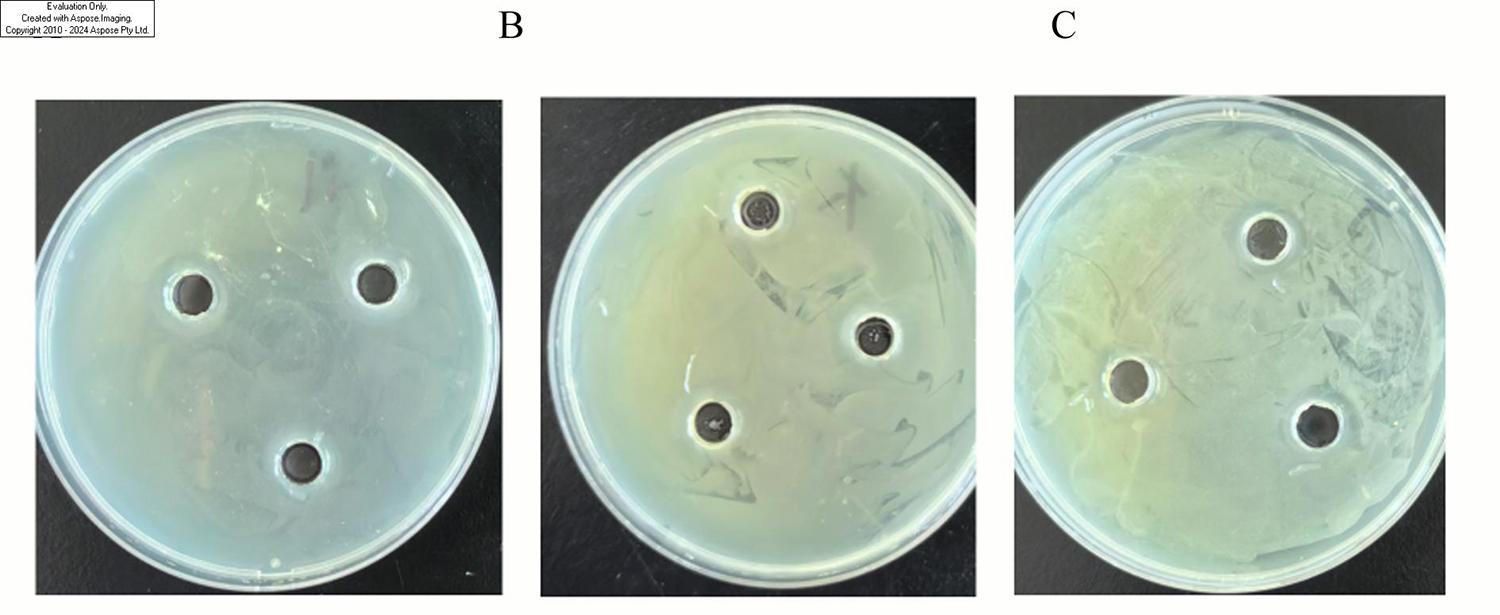
采用牛津杯法[12]测定菌株的抑菌活性,将病原指示菌(大肠杆菌、鼠伤寒沙门氏菌和金黄色葡萄球菌)的过夜培养液(1×10⁸ CFU/mL)涂布于LB琼脂平板;待平板表面干燥后,用牛津杯在平板上打孔,并用镊子将多余琼脂夹出;向杯中加入100 μL待测乳酸菌菌液(1×10⁸ CFU/mL),每个处理3个重复,37 ℃培养24 h后,采用游标卡尺测量抑菌圈直径;将不接种菌液的MRS肉汤培养基加入杯中作为阴性对照。

1.4.6 抗生素敏感性测定

参考Hou等[13]的方法进行菌株的药敏试验,将菌株接入MRS肉汤培养基,在37 ℃摇床中过夜培养,用无菌磷酸盐缓冲液(PBS)溶液调整浊度与比浊管相同;将乳酸菌菌液均匀涂布于MRS琼脂培养基上,待平板表面干燥后贴相应药敏片,每种药敏片3个重复,培养后测量抑菌圈直径;根据美国临床和实验室标准协会(CLSI)标准判定敏感(S)、中介(I)和耐药(R)。所用药敏片分别为青霉素、氨苄西林、头孢曲松、庆大霉素、四环素、红霉素、环丙沙星、林可霉素、复方新诺明和氯霉素。

1.4.7 溶血性测定

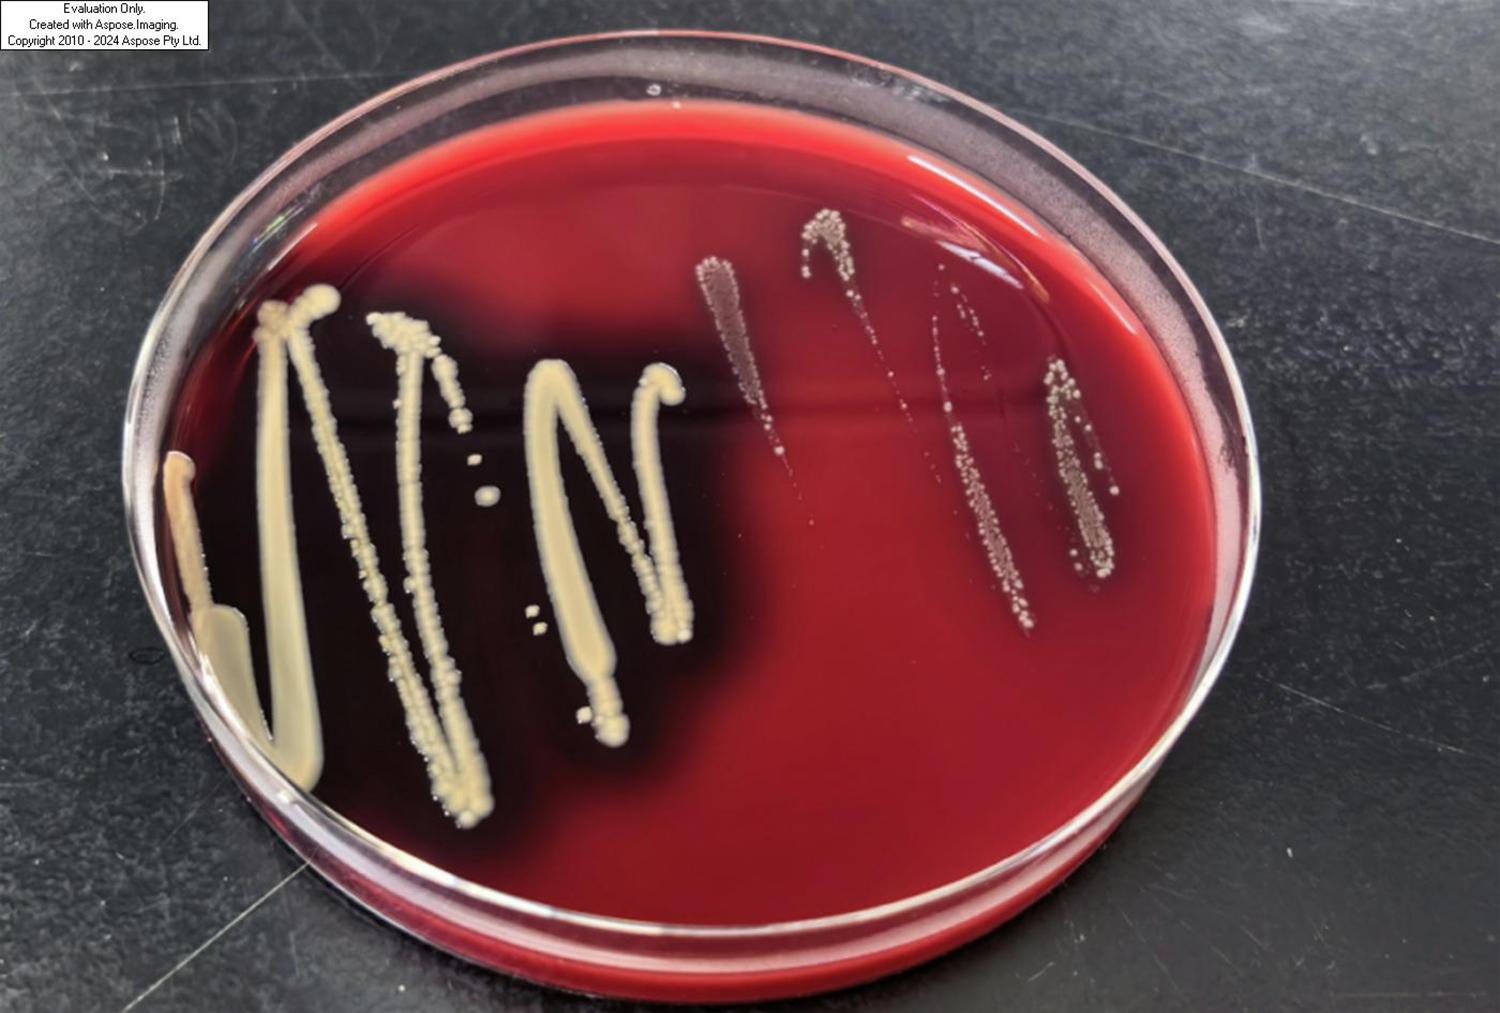
将待测菌株活化后,划线接种于哥伦比亚血琼脂平板,以金黄色葡萄球菌为阳性对照,37 ℃培养24 h后观察溶血现象。

1.4.8 动物安全性评估

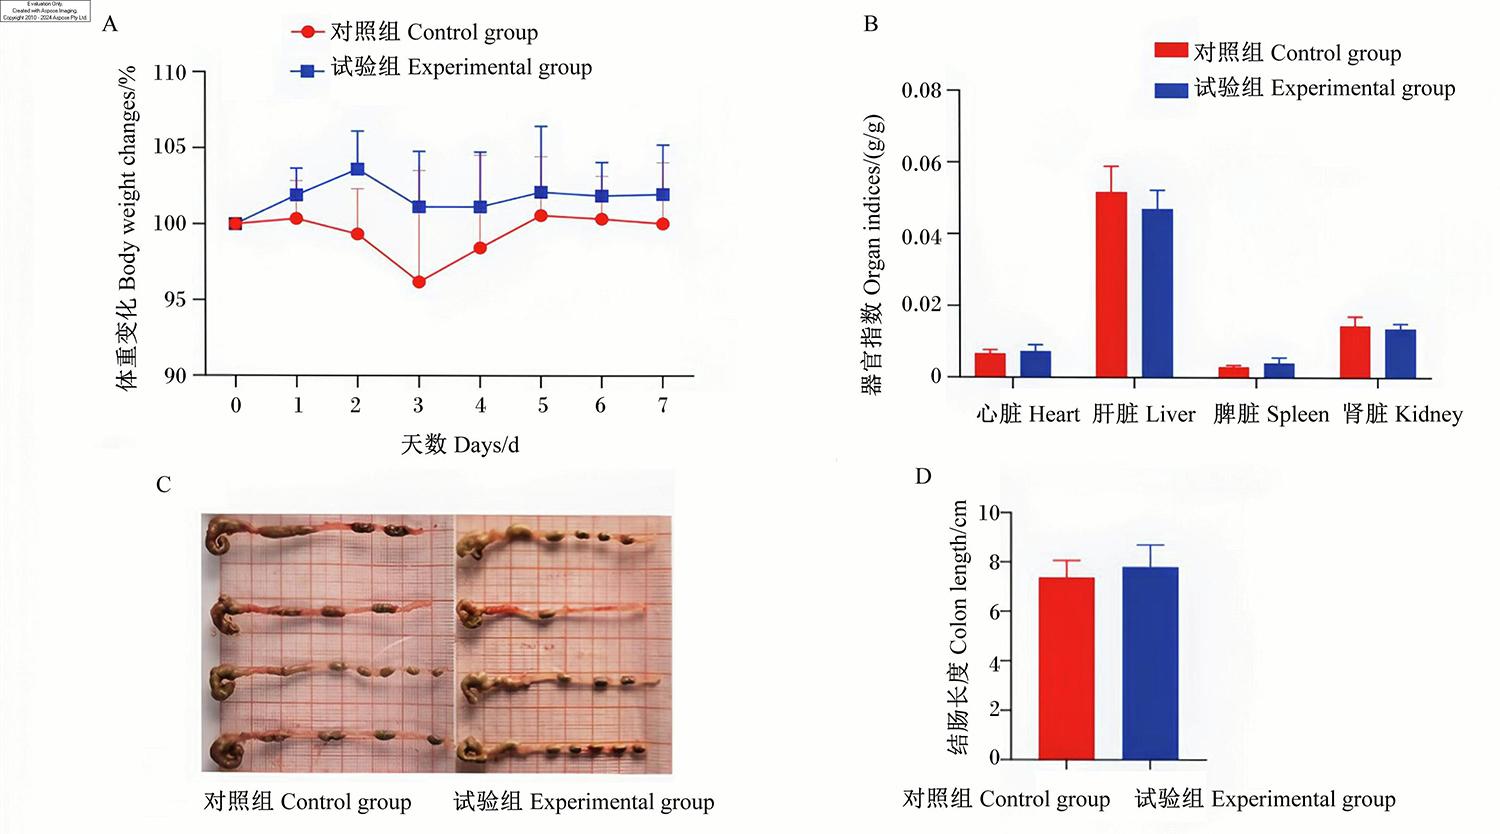
本研究选用12只7周龄BALB/c小鼠作为试验动物,以评价菌株的安全性。小鼠饲养于标准卫生条件下,环境温度为20 ℃,相对湿度为40%,并设定正常光暗循环。整个试验期间,所有小鼠均饲喂基础饲粮,自由饮水,并连续灌胃生理盐水7 d以适应环境。适应期结束后,将小鼠随机分为对照组和试验组,每组6个重复,每个重复1只。试验组小鼠每日灌胃200 μL剂量为1×10⁸ CFU的罗伊氏黏液乳杆菌组,连续灌胃7 d;对照组灌胃等体积生理盐水。试验期间,每日观察各组小鼠的活动状态、行为表现、精神状况、腹泻情况及体重变化。灌胃7 d后,采用颈椎脱臼法处死全部动物,并采集心脏、肝脏、脾脏、肾脏后依次称重,计算器官指数;再取完整结肠后测量其长度。

1.5 数据统计分析

试验数据采用Excel 2021进行整理,采用GraphPad Prism 8软件进行图形绘制和数据统计,结果数据以“平均值±标准差”形式表示,P<0.05表示差异显著。

2 结果与分析

2.1 菌株分离和纯化结果

本试验从犊牛粪便中分离获得一株生长稳定、菌落均一的菌株,命名为罗伊氏黏液乳杆菌KY-1,已提交至中国普通微生物菌种保藏管理中心(保藏号:CGMCC No. 36229)。

2.2 分子生物学鉴定结果

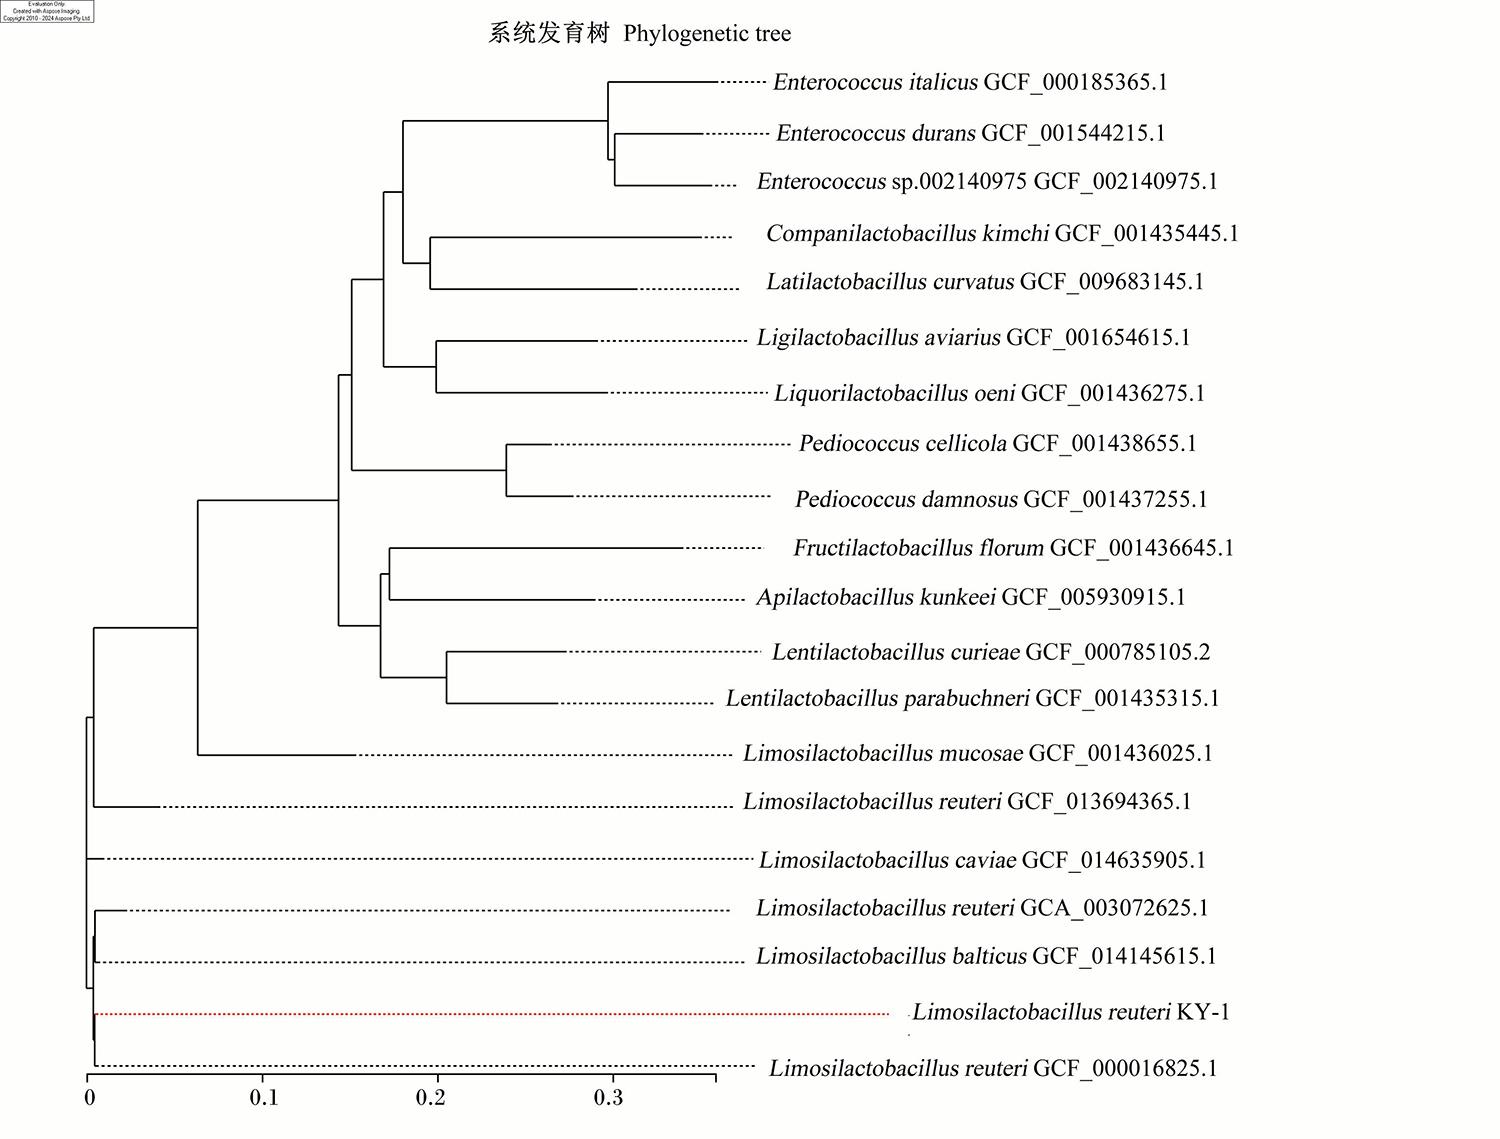
图1所示,16S rRNA基因测序结果显示,菌株罗伊氏黏液乳杆菌KY-1与罗伊氏黏液乳杆菌模式菌株GCF_000016825.1相似性达99%,系统发育树聚为同一分支,鉴定为罗伊氏黏液乳杆菌。
图1 罗伊氏黏液乳杆菌KY-1系统发育树

Enterococcus italicus:意大利肠球菌;Enterococcus durans:耐久肠球菌;Enterococcus sp002140975:肠球菌sp002140975;Companilactobacillus kimchii:泡菜伴生乳杆菌;Latilactobacillus curvatus:弯曲广泛乳杆菌;Ligilactobacillus aviarius:禽联合乳杆菌;Liquorilactobacillus oeni:酒液体乳杆菌;Pediococcus cellicola:酒窖片球菌;Pediococcus damnosus:有害片球菌;Fructilactobacillus florum:花实乳杆菌;Apilactobacillus kunkeei:昆克蜂乳杆菌;Lentilactobacillus curieae:居里氏慢乳杆菌;Lentilactobacillus parabuchneri:类布氏慢乳杆菌;Limosilactobacillus mucosae:黏膜黏液乳杆菌;Limosilactobacillus reuteri:罗伊氏黏液乳杆菌;Limosilactobacillus caviae:豚鼠黏液乳杆菌;Limosilactobacillus balticus:波罗的海黏液乳杆菌。

Fig.1 Phylogenetic tree of Limosilactobacillus reuteri KY-1

2.3 全基因组测序分析

2.3.1 菌株基因组基本特征

本试验对罗伊氏黏液乳杆菌KY-1进行全基因组测序分析发现,该菌株序列长度为2 378 274 bp,GC含量为38.23%,核心基因完整性达98.40%。

2.3.2 菌株基因组KEGG功能注释

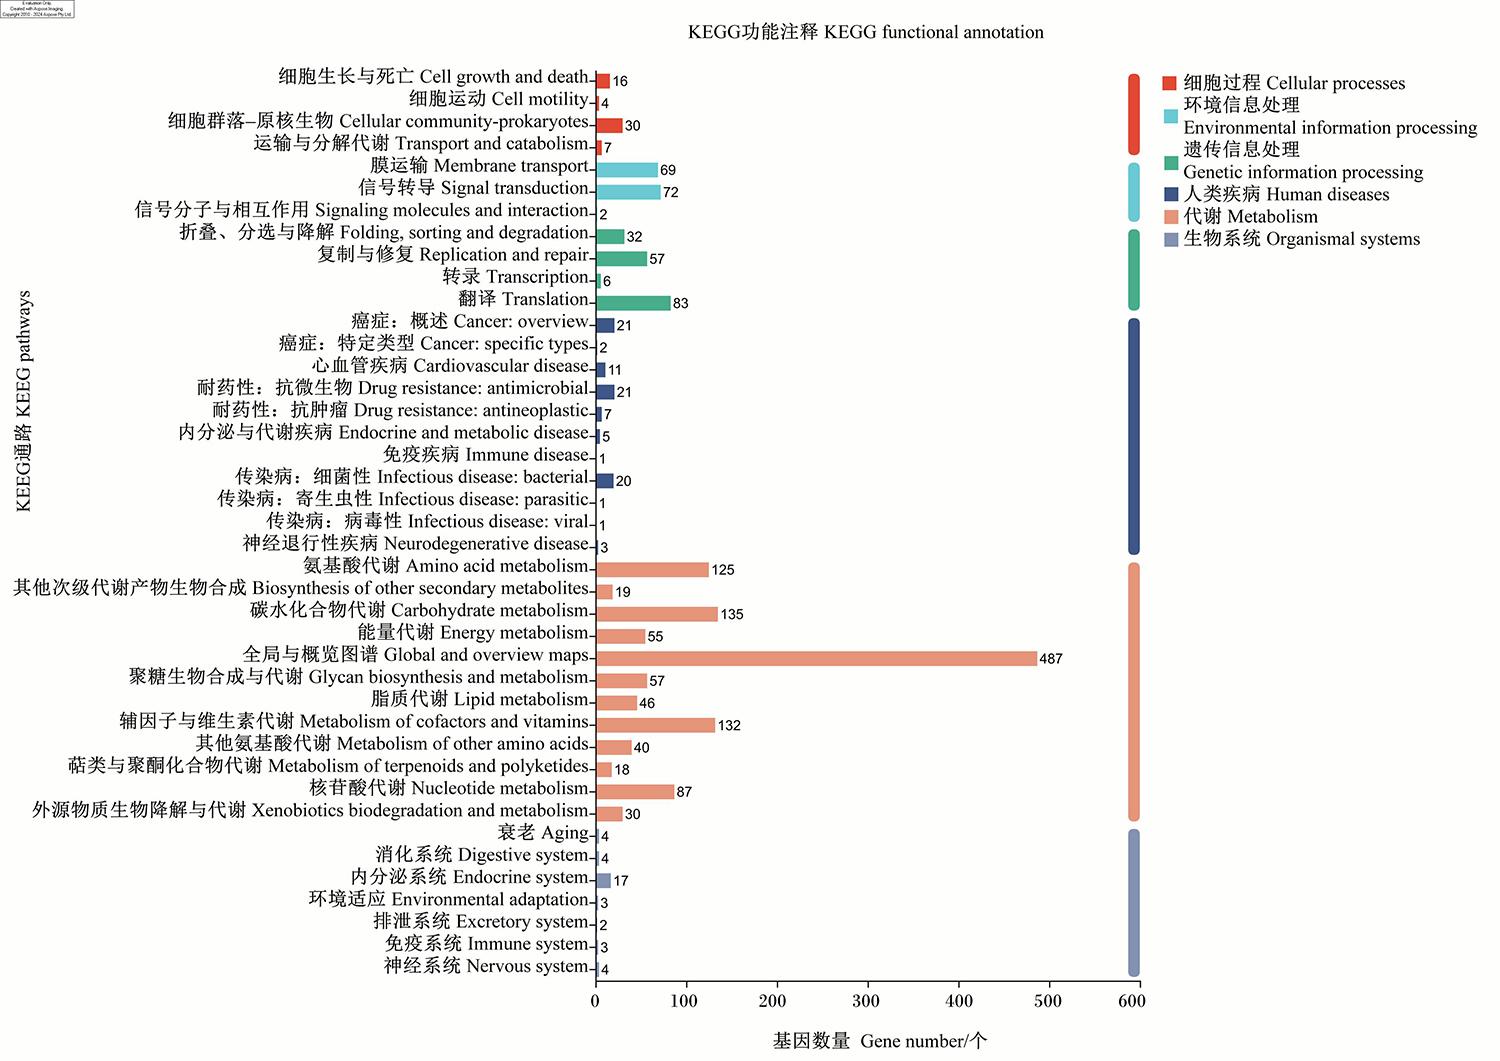
图2所示,采用KEGG数据库对罗伊氏黏液乳杆菌KY-1全基因组序列进行功能注释,共注释到1 739个功能基因。其中,参与代谢的基因数量最多,参与遗传信息处理的基因数量次之,参与生物系统的基因数量最少。在参与代谢的相关基因中,参与碳水化合物代谢的基因有135个,参与氨基酸代谢的基因有125个,参与辅因子与维生素代谢的基因有132个,参与核苷酸代谢的基因有87个;在参与遗传信息处理的相关基因中,参与翻译的基因有83个,参与复制与修复的基因有57个;在参与环境信息处理的相关基因中,参与信号转导的基因有72个,参与膜运输的基因有69个。
图2 罗伊氏黏液乳杆菌KY-1基因组KEGG功能注释

Fig.2 KEGG functional annotation of Limosilactobacillus reuteri KY-1 genome

2.3.3 菌株次级代谢通路分析

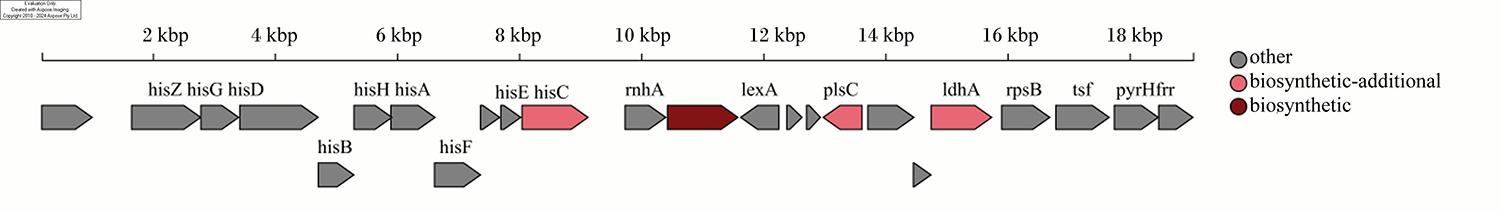
图3所示,罗伊氏黏液乳杆菌KY-1次级代谢产物合成相关基因的检测结果显示,在2 000~18 000 bp的片段内,其基因组中存在biosynthetic(生物合成的)和biosynthetic-additional(生物合成附加的)2类次级代谢产物合成关键基因,同时富集了大量功能相关基因,包括组氨酸合成通路基因(hisZhisGhisDhisAhisHhisEhisChisBhisF)、核酸代谢与修复基因(rnhAlexA)、乳酸脱氢酶基因(ldhA)、核糖体蛋白与翻译延伸相关基因(rpsBtsffrr)、嘧啶合成基因(pyrH)以及磷脂合成基因(plsC),其余为其他功能相关基因,各类基因在不同片段区间呈特异性分布特征。
图3 罗伊氏黏液乳杆菌KY-1次级代谢通路分析

other:其他;biosynthetic-additional:生物合成附加的;biosynthetic:生物合成的。

Fig.3 Analysis of secondary metabolic pathways of Limosilactobacillus reuteri KY-1

2.4 生长和产酸曲线

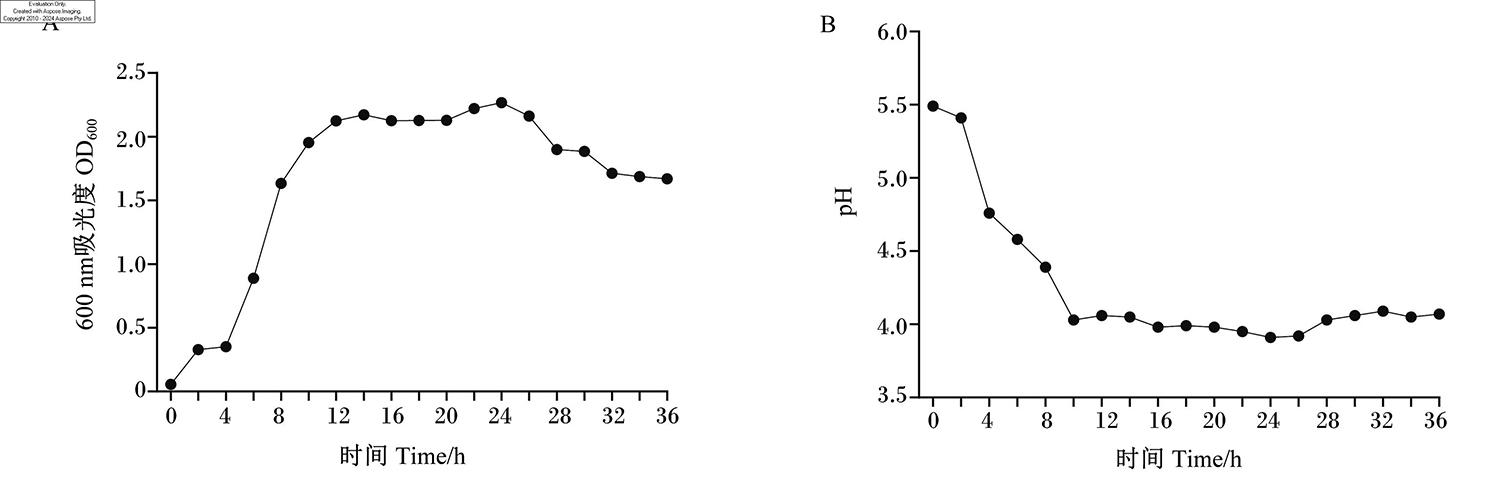
图4所示,罗伊氏黏液乳杆菌KY-1接种4 h后进入对数生长期,14 h进入稳定期;同时,产酸与生长同步,24 h时使MRS肉汤pH降至4.0以下,产酸能力强。
图4 罗伊氏黏液乳杆菌KY-1生长(A)和产酸曲线(B)

Fig.4 Growth (A) and acid production curve (B) of Limosilactobacillus reuteri KY-1

2.5 耐受性

图5所示,罗伊氏黏液乳杆菌KY-1在pH为4.5~5.0时存活率大于75.00%,在pH<3.5时存活率明显降低;在0.3%胆盐中存活率为14.78%;在人工胃液中的存活率为25.65%,在人工肠液中的相对存活率则为120.18%。
图5 罗伊氏黏液乳杆菌KY-1耐受性

Fig.5 Tolerance of Limosilactobacillus reuteri KY-1

2.6 抑菌活性

表1图6可知,牛津杯法试验结果表明,罗伊氏黏液乳杆菌KY-1及其发酵上清液对多种常见病原菌均有明显抑制作用,其对大肠杆菌的抑菌圈直径为(16.00±1.00) mm,对鼠伤寒沙门氏菌为(14.33±1.25) mm,对金黄色葡萄球菌也有可见抑制圈,显示出广谱的抑菌潜力。
表1 罗伊氏黏液乳杆菌KY-1抑菌活性

Table 1 Antibacterial activity of Limosilactobacillus reuteri KY-1mm

指示菌 Indicator bacteria 抑菌圈的直径 Diameter of inhibition zone
大肠杆菌 Escherichia coli 16.00±1.00(++)
鼠伤寒沙门氏菌 Salmonella Typhimurium 14.33±1.25(++)
金黄色葡萄球菌 Staphylococcus aureus 12.33±0.58(+)

+表示抑菌圈直径为5~14 mm,++表示抑菌圈直径为14~23 mm。

+ indicated that the diameter of inhibition zone was 5 to 14 mm, and ++ indicated that the diameter of inhibition zone was 14 to 23 mm.

图6 罗伊氏黏液乳杆菌KY-1抑菌活性示意图

A、B和C分别为菌株对大肠杆菌、鼠伤寒沙门氏菌和金黄色葡萄球菌的抑菌效果。

Fig.6 Schematic diagram of antibacterial activity of Limosilactobacillus reuteri KY-1

A, B and C represented antibacterial effects of the strain on Escherichia coli, Salmonella Typhimurium and Staphylococcus aureus, respectively.

2.7 安全性评估

2.7.1 溶血性

图7所示,罗伊氏黏液乳杆菌KY-1在哥伦比亚血琼脂平板上无溶血环,表明其无溶血活性(γ溶血)。
图7 罗伊氏黏液乳杆菌KY-1溶血性

左为金黄色葡萄球菌,右为罗伊氏黏液乳杆菌KY-1。

Fig.7 Hemolysis of Limosilactobacillus reuteri KY-1

On the left was Staphylococcus aureus, and on the right was Limosilactobacillus reuteri KY-1.

2.7.2 抗生素敏感性

表2可知,罗伊氏黏液乳杆菌KY-1对青霉素、氨苄西林、头孢曲松、四环素、红霉素和氯霉素敏感,对庆大霉素、环丙沙星、林可霉素和复方新诺明天然耐药。
表2 罗伊氏黏液乳杆菌KY-1抗生素敏感性

Table 2 Antibiotic susceptibility of Limosilactobacillus reuteri KY-1

抗生素
Antibiotics
罗伊氏黏液乳杆菌KY-1
Limosilactobacillus reuteri KY-1
大肠杆菌
Escherichia coli
青霉素 Penicillin S R
氨苄西林 Ampicillin S R
头孢曲松 Ceftriaxone S S
庆大霉素 Gentamicin R S
四环素 Tetracycline S S
红霉素 Erythromycin S R
环丙沙星 Ciprofloxacin R S
林可霉素 Lincomycin R R
复方新诺明 Compound sulfamethoxazole R S
氯霉素 Chloramphenicol S R

S:敏感 susceptible;R:耐药 resistant。

2.7.3 动物安全性评估

在整个试验期间,本试验中所有小鼠均未出现腹泻及死亡情况;同时,2组小鼠在行为、皮毛状态及精神表现方面均未见明显差异。如图8所示,连续灌胃罗伊氏黏液乳杆菌KY-1 7 d后,试验组小鼠体重变化高于对照组;同时,试验组各器官指数及结肠长度与对照组相比均无显著差异(P>0.05)。
图8 罗伊氏黏液乳杆菌KY-1动物安全性评估

A:小鼠体重变化 body weight changes of mice;B:小鼠器官指数 Organ indices of mice;C:小鼠结肠 colons of mice;D:小鼠结肠长度 colon length of mice。

数据柱无字母标记表示差异不显著(P>0.05)。Value columns with no letters mean no significant difference (P>0.05).

Fig.8 Animal safety assessment of Limosilactobacillus reuteri KY-1

3 讨论

3.1 罗伊氏黏液乳杆菌KY-1耐受性和生长特性

研究表明,益生菌需具备良好的胃肠道耐受性,方能抵御胃酸与胆盐的胁迫作用,完整到达肠道并发挥其益生功能[14-15]。在正常生理状态下,犊牛真胃pH可低至3.0左右[16],小肠内胆盐浓度一般为0.03%~0.30%[17]。本试验中,罗伊氏黏液乳杆菌KY-1在pH为4.5~5.0酸性条件下表现出良好的耐受能力,可能是因为菌株中谷氨酸脱羧酶基因(gadB)可催化谷氨酸脱羧生成γ-氨基丁酸(GABA),该过程消耗1个胞内质子,从而提高胞内pH[18];同时,GABA通过谷氨酸/GABA反向转运蛋白基因(gadC)外排,进一步维持质子驱动力[19]。此外,罗伊氏黏液乳杆菌KY-1在0.3%胆盐下的存活率达14.78%。基因组注释结果显示,该菌株携带胆盐水解酶(BSH)相关基因(bsh1、bsh2),BSH可催化结合型胆盐水解脱去甘氨酸或牛磺酸,从而降低胆盐的表面活性及其毒性[20]。同时,注释到的ABC转运蛋白家族基因(如msbAoppF)可能参与胆盐外排及细胞膜修复过程[21]。Bi等[22]通过将BSH基因转入其他菌株,直接观察到宿主菌株胆盐耐受性的提升,由此发现BSH活性与胆盐耐受性呈正相关,该结果进一步支持BSH在细菌胆盐适应中发挥核心作用的观点。杨媚[23]从宁乡猪粪便中分离的罗伊氏黏液乳杆菌,以及张如春等[24]从狐狸肠道中分离的罗伊氏黏液乳杆菌的耐受性研究结果,均与本试验结果一致,表明罗伊氏黏液乳杆菌作为益生菌,在不同物种中均展现出良好的胃肠道耐受能力。

3.2 罗伊氏黏液乳杆菌KY-1产酸和抑菌特性

乳酸菌通过代谢产生有机酸、降低环境pH,并经细胞质酸化及解离酸阴离子的累积达到毒性水平,从而抑制革兰氏阳性菌和革兰氏阴性菌的生长[25-26]。因此,乳酸菌的产酸能力是衡量其作为益生菌抑制病原微生物潜力的重要指标[27]。本试验分离出的罗伊氏黏液乳杆菌KY-1表现出极强的产酸能力,培养24 h即可使MRS肉汤pH降至4.0以下。结合全基因组分析,该菌株的强产酸能力可能与乳酸脱氢酶基因(ldhA)的存在密切相关。环境pH的快速降低可有效抑制大肠杆菌、沙门氏菌等常见肠道病原菌的生长[28],这与本试验中菌株明显抑制大肠杆菌、鼠伤寒沙门氏菌和金黄色葡萄球菌生长的结果一致。上述结果表明,罗伊氏黏液乳杆菌KY-1可能通过“特异性抑菌物质+有机酸介导的pH调控”双重机制发挥广谱抑菌作用。

3.3 罗伊氏黏液乳杆菌KY-1生物安全性评估

益生菌在广泛应用背景下,可能成为抗生素耐药基因传播的载体[29]。因此,开展药敏试验对于益生菌筛选具有重要意义。本试验选取10种临床常用抗生素对分离菌株罗伊氏黏液乳杆菌KY-1进行药敏试验,结果显示,该菌株对青霉素、氨苄西林、头孢曲松、四环素、红霉素和氯霉素敏感,对庆大霉素、环丙沙星、林可霉素和复方新诺明天然耐药。目前,多数乳酸菌携带四环素抗性基因[30]。值得注意的是,罗伊氏黏液乳杆菌KY-1对环丙沙星的天然耐药性可能涉及其对外排泵系统及细胞膜通透性的综合影响,可通过进一步分析全基因组中的耐药基因和毒力因子注释结果加以确认,以确保其遗传学安全性。
为进一步验证罗伊氏黏液乳杆菌KY-1在宿主体内的安全性,本研究采用小鼠灌胃模型,连续7 d以1×10⁸ CFU剂量灌胃罗伊氏黏液乳杆菌KY-1菌液。试验期间,所有小鼠均未出现腹泻、死亡或异常行为表现,2组小鼠在行为、皮毛状态及精神表现方面均未见明显差异。在体重变化方面,试验组小鼠的体重增长略高于对照组;各器官指数及结肠长度与对照组相比均无显著差异。上述结果表明,罗伊氏黏液乳杆菌KY-1在体内条件下不具备急性毒性或致病性,未引起脏器肿大、萎缩或炎症性病变,也未诱发结肠炎症。综合体外与体内安全性评估结果,菌株罗伊氏黏液乳杆菌KY-1符合益生菌安全性评价的基本标准。
本研究选择7 d灌胃周期进行体内安全性评估,主要依据联合国粮食及农业组织(FAO)/世界卫生组织(WHO)推荐的益生菌初步安全性评价流程。该周期足以识别菌株对宿主的急性及亚急性毒性反应。结合体外溶血性试验、抗生素敏感性测定及全基因组耐药和毒力基因注释结果,可较为可靠地判断菌株的短期生物安全性。然而,7 d周期尚不足以充分反映亚慢性毒性及长期定植风险[31],后续研究仍需开展更长期动物试验,以系统评估其亚慢性毒性和定植风险。

4 结论

本研究从健康荷斯坦犊牛粪便中成功分离获得一株罗伊氏黏液乳杆菌KY-1,该菌株具备良好的耐受性、快速的生长和产酸能力以及广谱的抑菌活性,且通过体外表型试验与全基因组测序联合分析证实其生物安全性良好、益生机制清晰。研究结果为该菌株作为犊牛专用益生菌制剂的产业化开发提供了科学依据,也为后续开展动物体内试验、解析其在反刍动物肠道中的作用机制奠定了基础。
[1]
GUASCO C, MORICONI M, VITALE N, et al. Weaning as stressor for calf welfare[J]. Animals, 2025, 15(9):1272.

[2]
中华人民共和国农业农村部. 中华人民共和国农业农村部公告第194号[EB/OL].(2019-07-09)[2026-02-21]. https://www.moa.gov.cn/gk/tzgg_1/gg/201907/t20190710_6320678.htm.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China.Announcement No. 194 of the Ministry of Agriculture and Rural Affairs of the People’s Republic of China[EB/OL].(2019-07-09)[2026-02-21]. https://www.moa.gov.cn/gk/tzgg_1/gg/201907/t20190710_6320678.htm. (in Chinese)

[3]
LI Y Y, LI X, NIE C X, et al. Effects of two strains of Lactobacillus isolated from the feces of calves after fecal microbiota transplantation on growth performance,immune capacity,and intestinal barrier function of weaned calves[J]. Frontiers in Microbiology, 2023, 14:1249628.

[4]
TALARICO T L, DOBROGOSZ W J. Chemical characterization of an antimicrobial substance produced by Lactobacillus reuteri[J]. Antimicrobial Agents and Chemotherapy, 1989, 33(5):674-679.

[5]
SUN M C, HU Z Y, LI D D, et al. Application of the reuterin system as food preservative or health-promoting agent:a critical review[J]. Foods, 2022, 11(24):4000.

[6]
ORTIZ-RIVERA Y, SÁNCHEZ-VEGA R, GUTIÉRREZ-MÉNDEZ N, et al. Production of reuterin in a fermented milk product by Lactobacillus reuteri:inhibition of pathogens,spoilage microorganisms,and lactic acid bacteria[J]. Journal of Dairy Science, 2017, 100(6):4258-4268.

[7]
TORRES-MARAVILLA E, REYES-PAVÓN D, BENÍTEZ-CABELLO A, et al. Strategies for the identification and assessment of bacterial strains with specific probiotic traits[J]. Microorganisms, 2022, 10(7):1389.

[8]
XIAO Y, ZHAI Q X, ZHANG H, et al. Gut colonization mechanisms of Lactobacillus and Bifidobacterium:an argument for personalized designs[J]. Annual Review of Food Science and Technology, 2021, 12:213-233.

[9]
李元元, 李鑫, 何泽纯, 等. 牛源乳酸菌的分离鉴定及体外益生特性研究[J]. 动物营养学报, 2024, 36(1):626-636.

LI Y Y, LI X, HE Z C, et al. Isolation and identification of lactic acid bacteria from calves and their probiotic properties in vitro[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):626-636. (in Chinese)

[10]
吴晓婷, 王召路, 朱莉莉, 等. 猪源益生性乳酸菌的分离鉴定及生物学特性研究[J]. 动物营养学报, 2025, 37(4):2750-2762.

WU X T, WANG Z L, ZHU L L, et al. Isolation,identification and biological characteristics of probiotic lactic acid bacteria derived from porcine[J]. Chinese Journal of Animal Nutrition, 2025, 37(4):2750-2762. (in Chinese)

[11]
李利, 孔丽, 张宁, 等. 耐酸耐胆盐乳酸菌的鉴定及筛选[J]. 食品科学, 2015, 36(21):123-128.

LI L, KONG L, ZHANG N, et al. Identification and selection of lactic acid bacteria resistant to acid and bile salt[J]. Food Science, 2015, 36(21):123-128. (in Chinese)

[12]
崔素素. 乳酸菌优良菌株的筛选及CRISPR多样性分析[D]. 硕士学位论文. 哈尔滨: 哈尔滨工业大学, 2019.

CUI S S. Screening of excellent strains of lactic acid bacteria and analysis of CRISPR diversity[D]. Master’s Thesis.Harbin:Harbin Institute of Technology, 2019. (in Chinese)

[13]
HOU M, LU Y B, YE M J, et al. Characterization and assessment of sheep-origin probiotic Bacillus licheniformis B63 strain for potential use in intestinal health and disease[J]. Probiotics and Antimicrobial Proteins, 2025, 17(2):781-793.

[14]
MARTINS F S, MIRANDA I C, ROSA C A, et al. Effect of the trehalose levels on the screening of yeast as probiotic by in vivo and in vitro assays[J]. Brazilian Journal of Microbiology, 2008, 39(1):50-55.

[15]
KLAENHAMMER T R, KULLEN M J. Selection and design of probiotics[J]. International Journal of Food Microbiology, 1999, 50(1/2):45-57.

[16]
VAN WINDEN S C L, MÜLLER K E, KUIPER R, et al. Studies on the pH value of abomasal contents in dairy cows during the first 3 weeks after calving[J]. Journal of Veterinary Medicine Series A, 2002, 49(3):157-160.

[17]
丁香, 孙浩然, 伍国宏, 等. 8株野生动物园爬行动物冬眠后初粪源乳酸菌的分离鉴定及益生特性评估[J]. 动物营养学报, 2026, 38(2):1569-1580.

DING X, SUN H R, WU G H, et al. Isolation,identification and probiotic characteristics evaluation of 8 strains of lactic acid bacteria from post-hibernation initial feces of reptiles in a wild animal zoo[J]. Chinese Journal of Animal Nutrition, 2026, 38(2):1569-1580. (in Chinese)

[18]
SU M S, SCHLICHT S, GÄNZLE M G. Contribution of glutamate decarboxylase in Lactobacillus reuteri to acid resistance and persistence in sourdough fermentation[J]. Microbial Cell Factories, 2011, 10(1):S8.

[19]
DEL ALAMO D, DESOUSA L, NAIR R M, et al. Integrated AlphaFold2 and DEER investigation of the conformational dynamics of a pH-dependent APC antiporter[J]. Proceedings of the National Academy of Sciences, 2022, 119(34):e2206129119.

[20]
BEGLEY M, HILL C, GAHAN C G M. Bile salt hydrolase activity in probiotics[J]. Applied and Environmental Microbiology, 2006, 72(3):1729-1738.

[21]
YAN N N, LUO T, WANG Y M, et al. Transcriptomic and biochemical analyses reveal the cell membrane defense regulated by LiaFSR-LiaX system in Lacticaseibacillus paracasei L9 under bile salt stress[J]. Food Bioscience, 2024, 62:105145.

[22]
BI J, LIU S, DU G C, et al. Bile salt tolerance of Lactococcus lactis is enhanced by expression of bile salt hydrolase thereby producing less bile acid in the cells[J]. Biotechnology Letters, 2016, 38(4):659-665.

[23]
杨媚. 宁乡猪源罗伊氏乳杆菌影响支链氨基酸代谢调控猪脂质沉积的研究[D]. 博士学位论文. 长沙: 湖南农业大学, 2024.

YANG M. The study of NX pig-derived Lactobacillus reuteri on branched-chain amino acid metabolism to regulate lipid deposition in pigs[D]. Ph.D. Thesis. Changsha: Hunan Agricultural University, 2024. (in Chinese)

[24]
张如春, 崔焕忠, 蔡熙姮, 等. 狐源罗伊氏乳杆菌ZJF036益生特性研究[J]. 动物营养学报, 2020, 32(8):3819-3829.

ZHANG R C, CUI H Z, CAI X H, et al. Probiotic characteristics of Lactobacillus reuteri ZJF036 isolated from fox[J]. Chinese Journal of Animal Nutrition, 2020, 32(8):3819-3829. (in Chinese)

[25]
TEJERO-SARIÑENA S, BARLOW J, COSTABILE A, et al. In vitro evaluation of the antimicrobial activity of a range of probiotics against pathogens:evidence for the effects of organic acids[J]. Anaerobe, 2012, 18(5):530-538.

[26]
PIETERSE B, LEER R J, SCHUREN F H J, et al. Unravelling the multiple effects of lactic acid stress on Lactobacillus plantarum by transcription profiling[J]. Microbiology, 2005, 151(12):3881-3894.

[27]
MARCHWIŃSKA K, GWIAZDOWSKA D. Isolation and probiotic potential of lactic acid bacteria from swine feces for feed additive composition[J]. Archives of Microbiology, 2022, 204(1):61.

[28]
FANG S C, SONG X, CUI L R, et al. The lactate dehydrogenase gene is involved in the growth and metabolism of Lacticaseibacillus paracasei and the production of fermented milk flavor substances[J]. Frontiers in Microbiology, 2023, 14:1195360.

[29]
FATAHI-BAFGHI M, NASERI S, ALIZEHI A. Genome analysis of probiotic bacteria for antibiotic resistance genes[J]. Antonie van Leeuwenhoek, 2022, 115(3):375-389.

[30]
KASZAB E, LACZKÓ L, KARDOS G, et al. Antimicrobial resistance genes and associated mobile genetic elements in lactobacillales from various sources[J]. Frontiers in Microbiology, 2023, 14:1281473.

[31]
麦多, 肖莹, 吕蕊雪, 等. 1株羊源解淀粉芽孢杆菌的分离鉴定及安全性评价[J]. 动物营养学报, 2026, 38(5):3937-3950.

MAI D, XIAO Y, LV R X, et al. Isolation,identification and safety evaluation of a sheep-derived Bacillus amyloliquefaciens strain[J]. Chinese Journal of Animal Nutrition, 2026, 38(5):3937-3950. (in Chinese)

文章导航

/