研究论文

5株乳酸菌益生特性、安全性及全基因组分析

  • 袁鸿宇 , 1, 2 ,
  • 杨瑞思 1 ,
  • 刘佳佳 1, 2 ,
  • 王峰 1, 2 ,
  • 林奕岑 1, 2 ,
  • 张棋麟 1, 2 ,
  • 林连兵 , 1, 2, *
展开
  • 1 昆明理工大学生命科学与技术学院, 昆明 650500
  • 2 云南省高校饲用抗生素替代技术工程研究中心, 昆明 650500
*林连兵,教授,博士生导师,E-mail:

袁鸿宇(2002—),女,云南昆明人,硕士研究生,研究方向为噬菌体与肠道微生物。E-mail:

Office editor: 田艳明

收稿日期: 2026-01-04

  网络出版日期: 2026-08-13

基金资助

云南省高校饲用抗生素替代技术工程研究中心建设项目(241620190051)

Probiotic Properties, Safety and Whole-Genome Analysis of Five Strains of Lactic Acid Bacteria

  • YUAN Hongyu , 1, 2 ,
  • YANG Ruisi 1 ,
  • LIU Jiajia 1, 2 ,
  • WANG Feng 1, 2 ,
  • LIN Yicen 1, 2 ,
  • ZHANG Qilin 1, 2 ,
  • LIN Lianbing , 1, 2, *
Expand
  • 1 School of Life Sciences and Technology, Kunming University of Science and Technology, Kunming 650500, China
  • 2 Engineering Research Center for Feed Antibiotic Replacement Technology, Yunnan Provincial Colleges and Universities, Kunming 650500, China
*professor, E-mail:

Received date: 2026-01-04

  Online published: 2026-08-13

摘要

本试验旨在对5株乳酸菌(唾液联合乳杆菌05、嘉义乳酪杆菌AACE3、副干酪乳酪杆菌XLK401、干酪乳酪杆菌AACE4和饲草联合乳杆菌AACE5)的益生特性和安全性进行评价,并通过全基因组分析探究其潜在的益生机制。试验通过体外法对菌株的抑菌性能、耐受性、表面特性、抗生素耐药性及溶血性进行评价,并采用Illumina二代与Nanopore三代相结合的测序技术进行全基因组测序,借助多种生物信息学工具和数据库对其基因组进行注释,从分子水平探究其益生机制和安全性。结果表明:1)5株乳酸菌在体外试验中均具备良好的抑菌活性及胆盐、肠胃液耐受性,且具备一定的疏水性和自聚集能力。2)5株乳酸菌均无溶血现象;除嘉义乳酪杆菌AACE3对四环素和多西环素有耐药性外,其余4株乳杆菌对绝大多数抗生素敏感或中度敏感。3)全基因组测序结果显示,5株乳酸菌基因组大小为1.92~3.10 Mbp,GC含量为33.51%~47.17%;系统发育树显示,副干酪乳酪杆菌XLK401与干酪乳酪杆菌AACE4亲缘关系较近,其他3株菌亲缘关系较远;5株菌含468个核心基因和5 593个附属基因,含少量四环素类抗生素耐药基因,未检测到毒力基因;除饲草联合乳杆菌AACE5外,其他4株菌均存在细菌素基因簇;5株菌均编码碳水化合物活性酶,其中饲草联合乳杆菌AACE5编码糖苷水解酶类最多(639个);5株菌均含有耐酸、耐热、抗氧化、DNA和蛋白质保护及修复以及黏附相关的益生基因,仅唾液联合乳杆菌05含有自聚集相关的MapA基因。综上所述,本试验研究的5株乳酸菌具有良好的益生特性和安全性,可作为益生菌制剂的潜在候选菌株。

本文引用格式

袁鸿宇 , 杨瑞思 , 刘佳佳 , 王峰 , 林奕岑 , 张棋麟 , 林连兵 . 5株乳酸菌益生特性、安全性及全基因组分析[J]. 动物营养学报, 2026 , 38(8) : 6257 -6275 . DOI: 10.12418/CJAN2026.500

Abstract

This study aimed to evaluate the probiotic properties and safety of five strains of lactic acid bacteria (Ligilactobacillus salivarius 05, Lacticaseibacillus chiayiensis AACE3, Lacticaseibacillus paracasei XLK401, Lacticaseibacillus casei AACE4 and Ligilactobacillus pabuli AACE5) and to explore their potential probiotic mechanisms through whole-genome analysis. The antibacterial activity, tolerance, surface characteristics, antibiotic resistance and hemolytic activity of the strains were evaluated using in vitro methods. Whole-genome sequencing was performed by combining Illumina (second-generation) and Nanopore (third-generation) sequencing technologies, and the genomes were annotated using various bioinformatics tools and databases to investigate the probiotic mechanisms and safety at the molecular level. The results showed as follows: 1) all five strains of lactic acid bacteria exhibited good antibacterial activity, tolerance to bile salts and simulated gastrointestinal fluids, as well as certain hydrophobicity and autoaggregation in vitro. 2) None of the five strains displayed hemolysis; except for Lacticaseibacillus chiayiensis AACE3, which was resistant to tetracycline and doxycycline, the other four strains were susceptible or intermediate to most antibiotics. 3) Whole-genome sequencing revealed that the genome sizes of the five strains ranged from 1.92 to 3.10 Mbp, with GC contents ranging from 33.51% to 47.17%. The phylogenetic tree indicated that Lacticaseibacillus paracasei XLK401 and Lacticaseibacillus casei AACE4 were closely related, while the other three strains were more distantly related. The five strains contained 468 core genes and 5 593 accessory genes, harbored a small number of tetracycline resistance genes, and no virulence genes were detected. Except for Ligilactobacillus pabuli AACE5, the other four strains all possessed bacteriocin gene clusters. All five strains encoded carbohydrate-active enzymes, among which Ligilactobacillus pabuli AACE5 encoded the highest number of glycoside hydrolases (639). All five strains contained probiotic genes related to acid tolerance, heat tolerance, oxidative stress resistance, protection and repair of DNA and proteins, and adhesion; and only Ligilactobacillus salivarius 05 harbored the MapA gene associated with autoaggregation. In conclusion, the five strains of lactic acid bacteria examined in this study exhibit good probiotic properties and safety, and can be considered as potential candidate strains for probiotic preparations.

在我国畜牧业领域,家禽养殖产业是重要的支柱性产业之一[1]。长期以来,抗生素作为饲料添加剂,在防控动物疫病、提高饲料利用率以及促进畜禽生长发育等方面发挥了重要作用[2]。然而,抗生素滥用会导致肠道菌群失调、细菌产生耐药性以及抗生素残留等诸多问题[3]。研究表明,万古霉素处理会促进小鼠肠道内肠杆菌科致病菌的异常增殖,破坏小鼠肠道内菌群平衡[4]。此外,在肉鸡养殖场的粪便样品中检测到了携带vanA转座子的肠球菌,这揭示动物源耐药基因可能通过生态系统的食物链传播给人类[5]。抗生素的残留对消费者的身体健康造成了潜在的威胁,全球多个国家已相继颁布“禁抗令”。在此背景下,研发一种高效且安全的抗生素替代品已成为家禽养殖领域中亟待解决的问题[6]
乳酸菌是一类触酶反应呈阴性的革兰氏阳性微生物,广泛存在于人和动物胃肠道、生殖道以及发酵食品中,具有调节免疫系统、改善肠道菌群结构、缓解肠道炎症以及促进肠道微生态环境正常化等多种功能[7]。乳酸菌被广泛应用于功能性食品、饲料添加剂及益生菌制剂的开发,在提高家禽饲料利用率、提高免疫能力和抵抗病原菌感染等领域展现出重要应用价值[8-10]。2018年,研究人员首次从牛粪中分离得到嘉义乳酪杆菌(Lacticaseibacillus chiayiensis)[11],并先后在混合发酵饲料中发现该菌的存在[12-13]。Li等[14]研究发现,嘉义乳酪杆菌可以通过调控雏鸡肠道菌群结构及其代谢产物,促进雏鸡生长发育、增强机体免疫功能并提升肝脏抗氧化能力。目前,已有研究表明多种乳酸菌在家禽养殖中具有替代抗生素的潜力。例如,饲喂肉鸡复合益生菌[含唾液联合乳杆菌(Ligilactobacillus salivarius)和屎肠球菌(Enterococcus faecium)]后,可显著增强肉鸡对沙门氏菌、大肠杆菌(Escherichia coli)和梭状芽孢杆菌的抵抗力[15]。副干酪乳酪杆菌(Lacticaseibacillus paracasei)是革兰氏阳性菌,兼性厌氧,可代谢多种碳水化合物[16],具有平衡肠道菌群、抗肿瘤等功能,被应用于食品发酵和益生菌产品的开发[17]。李昊等[18]研究发现,在蛋鸡饲粮中添加副干酪乳酪杆菌KL1微生态制剂,能够提高蛋壳强度和蛋黄相对重量,降低蛋黄胆固醇含量,提高蛋鸡的营养代谢效率。干酪乳酪杆菌(Lacticaseibacillus casei)可通过产生有益代谢物促进动物对养分的消化吸收,具有增强动物免疫力等功效,在畜牧生产中发挥着重要作用[19-20]。龙小文[21]研究发现,在蛋鸡饲粮中添加30~90 mg/kg干酪乳酪杆菌制剂,可以显著提高蛋鸡平均日产蛋重,降低料蛋比,并显著降低蛋鸡盲肠大肠杆菌和沙门氏菌数量,抑制病原菌定植。Elazab等[22]研究发现,干酪乳酪杆菌与嗜酸乳杆菌(Lactobacillus acidophilus)复合制剂能够显著降低肉鸡肾脏组织中铜含量以及炎症因子[肿瘤坏死因子-α(TNF-α)、白细胞介素-2(IL-2)]表达水平。唾液联合乳杆菌不产生孢子,在口腔中可调节微生态平衡,保护牙周环境,刺激免疫细胞分化成熟,抑制炎症因子产生[23]。Shojadoost等[24]研究发现,唾液联合乳杆菌通过激活鸡巨噬细胞的Toll样受体4(TLR4)/核因子-κB(NF-κB)信号通路,上调白细胞介素-1β(IL-1β)、干扰素-γ(IFN-γ)等细胞因子表达,增强机体对禽流感病毒的抗病毒免疫应答。此外,植物乳植杆菌(Lactiplantibacillus plantarum)、罗伊氏黏液乳杆菌(Limosilactobacillus reuteri)和干酪乳酪杆菌等多种乳酸菌已被我国《饲料添加剂品种目录》收录,表明益生菌作为禽畜养殖抗生素替代品具有广阔的应用前景。
近年来,生物技术的发展推动了乳酸菌益生功能的开发与应用。针对传统表型检测难以全面评估菌株安全性和益生特性的不足,基因组分析可以深入挖掘与安全性相关的毒力基因、耐药基因及与致病性、耐药性、益生相关的功能基因,从而更加精准、快速地检测菌株的安全性、益生性能及其分子机制[25-26]。林晓颖等[27]通过全基因组测序发现,弯曲广布乳杆菌(Latilactobacillus curvatus)HFS9含有益生相关基因且具有体内外益生特性,可作为益生菌候选菌株进一步开发利用。丁瑞培等[28]研究发现,动物双歧杆菌(Bifidobacterium animalis)B4具有良好的益生特性,在基因层面上展示出优良的安全性,具有益生特性的基因序列。王宵等[29]研究发现,植物乳植杆菌WX-1具有较好的益生菌特性和安全性,且满足产细菌素的先决条件。
本研究选用的唾液联合乳杆菌05、嘉义乳酪杆菌AACE3、副干酪乳酪杆菌XLK401、干酪乳酪杆菌AACE4和饲草联合乳杆菌(Ligilactobacillus pabuli)AACE5这5株乳酸菌均由昆明理工大学生命科学与技术学院噬菌体与肠道微生物课题组分离自发酵蓝莓和云南乌骨鸡肠道。课题组前期研究发现,唾液联合乳杆菌05的发酵液能有效延缓饲料霉变,可作为饲料防霉剂的替代品[30-31];将中药经副干酪乳酪杆菌XLK401和干酪乳酪杆菌AACE4发酵后可改善仔猪腹泻,显示出优良的益生潜力[32]。不过,前期研究中分别只对这5株乳酸菌进行了体外生物学特性研究,并没有集中且全面地比较研究这5株乳酸菌在益生潜力方面的机制。此外,随着基因组学的发展,可以进一步从分子水平上揭示乳酸菌的益生机制。因此,本试验通过生理水平和分子遗传水平系统评估5株乳酸菌的益生潜力,旨在较全面地揭示其基因型与表型的内在联系,以期为其作为替抗益生菌制剂的候选菌株提供依据。

1 材料与方法

1.1 试验菌株

试验所用5株乳酸菌以及4种病原指示菌弗氏志贺氏菌(Shigella flexneri)BDS8、大肠杆菌CMCC(B)44102、肠道沙门氏菌(Salmonella enterica)CMCC(B)50094和金黄色葡萄球菌(Staphylococcus aureus)ATCC 6538均由昆明理工大学生命科学与技术学院噬菌体与肠道微生物课题组保存。

1.2 培养基及主要试剂和仪器

哥伦比亚血琼脂基础培养基(青岛高科技工业园海博生物技术有限公司);药敏试纸(常德比克曼生物科技有限公司);立式压力蒸汽灭菌锅,LB、MRS干粉培养基(广东环凯微生物科技有限公司);细菌基因组DNA提取试剂盒[TIANamp Bacteria DNA Kit,天根生化科技(北京)有限公司];DL2000 DNA Marker[生工生物工程(上海)股份有限公司];电热恒温培养箱、恒温培养摇床(上海一恒科学仪器有限公司);普通型PCR扩增仪、凝胶成像系统(Bio-Rad,美国);琼脂糖凝胶电泳仪(北京六一生物科技有限公司);NanoDrop 2000分光光度计、冷冻离心机[赛默飞世尔科技(中国)有限公司];酶标仪(北京普朗新技术有限公司)。

1.3 抑菌性能测定

将5株乳酸菌接种到MRS液体培养基中,37 ℃培养24 h,收集菌液以11 200×g离心10 min,上清液经0.22 μm滤膜过滤后得到无细胞上清液(cell-free supernatant,CFS);将4种病原指示菌菌液浓度均调节为1×10⁷ CFU/mL,分别与半固体LB培养基混匀后倾注平板,置入牛津杯,并向其中加入200 μL CFS;37 ℃培养24 h,测量抑菌圈直径,每个试验设置3次重复。

1.4 耐受性试验

1.4.1 耐胆盐试验

将5株乳酸菌的菌悬液(1×10⁷ CFU/mL)接种到含0.3%胆盐的MRS液体培养基中,37 ℃培养4 h后,采用梯度稀释涂布平板法进行活菌计数,并计算存活率,计算公式如下:

存活率(%)=100×A1/A0

式中:A1为0.3%胆盐处理后的活菌总数量;A0为未处理的活菌总数量。

1.4.2 肠胃耐受性试验

将5株乳酸菌的菌悬液(1×10⁷ CFU/mL)分别接种到pH为2.0、3.0和4.0的人工模拟胃液[取无菌水和1 mol/L的氢氧化钠(NaOH)溶液与1 mol/L的盐酸(HCl)溶液混合,使pH分别为2.0、3.0和4.0,而后加入胃蛋白酶充分溶解,使浓度为0.01 g/mL,用0.22 μm滤器过滤除菌]以及pH为6.8的人工模拟肠液[称取6.8 g磷酸二氢钾(KH2PO4)溶解于500 mL蒸馏水,通过1 mol/L的NaOH溶液调节pH为6.8,而后加入10 g胰蛋白酶充分溶解,使浓度为0.01 g/mL,用0.22 μm滤器过滤除菌,于4 ℃保存备用]中,37 ℃下分别孵育3和4 h,同样通过平板计数法计算存活率,每个试验设置3次重复。存活率计算公式如下:

存活率(%)=100×N1/N0

式中:N1为人工肠胃液处理后的活菌总数量;N0为未处理的活菌总数量。

1.5 表面特性试验

1.5.1 疏水性测定

菌体经磷酸盐缓冲液(PBS,pH=7.4)重悬并调整600 nm吸光度(OD600 nm)值至0.60±0.05(记为Db),取5 mL菌悬液与1 mL二甲苯混匀,37 ℃孵育 1 h测定水相OD600 nm值(记为Dc)。每个试验重复3次,疏水性计算公式如下:

疏水性(%)=100×(1-Dc/Db)。

1.5.2 自聚性测定

菌体经PBS(pH=7.4)重悬并调整OD600 nm值至0.60±0.05(记为E0),取4 mL重悬液,室温静置3 h后,吸取上层1 mL菌悬液测定OD600 nm值(记为E1)。每个试验重复3次,自聚性计算公式如下:

自聚性(%)=100×(1-E1/E0)。

1.6 安全性评价

1.6.1 溶血性试验

将5株乳酸菌的菌悬液(1×10⁷ CFU/mL)划线接种在哥伦比亚血琼脂平板上,以金黄色葡萄球菌ATCC 6538作为阳性对照,37 ℃培养48 h,观察并记录5株乳酸菌的溶血现象,每个试验设置3次重复。

1.6.2 药敏试验

将5株乳酸菌的菌悬液(1×10⁷ CFU/mL)与MRS半固体培养基混匀后,在平板表面贴放10种抗生素药敏纸片,37 ℃培养24 h,观察是否形成明显透明圈。依据美国临床和实验室标准化协会(CLSI)2022年发布的第32版M100标准判定药敏结果,每个试验设置3次重复。

1.7 全基因组测序、组装及注释

5株乳酸菌的基因组测序工作由2家机构分工完成,其中唾液联合乳杆菌05的全基因组测序及组装工作由深圳华大基因股份有限公司完成,其他4株菌的测序工作由北京擎科生物科技股份有限公司完成。测序过程选用Illumina二代测序与Nanopore三代平台相结合的双策略,建库质检合格后,利用Unicycler v0.4.8开展序列组装,并借助Pilon v1.22完成基因组纠错。在基因功能注释中,采用Prokka v1.12进行编码基因预测,同时配套使用Aragorn、Barrnap及Infernal工具,分别完成转运RNA(tRNA)、核糖体RNA(rRNA)和杂项RNA(miscRNA)的预测[33-34]

1.8 生物信息学分析

本试验中5株乳酸菌的基因组序列已经上传至NCBI数据库(https://www.ncbi.nlm.nih.gov),其对应的登录号分别为JARUIP000000000.1、CP101685、CP098411、CP107523和JCBNVQ000000000。借助BPGA v1.3软件进行5株乳酸菌的泛基因组和核心基因组分析,采用邻接法构建系统发育树。采用COG数据库(https://www.ncbi.nlm.nih.gov/research/cog)对核心基因和特有基因进行功能分类;分别采用CAZy(https://www.cazy.org)、ARDB(https://ardb.cbcb.umd.edu)和VFDB(https://www.mgc.ac.cn/VFs/)数据库注释碳水化合物活性酶、抗生素耐药基因及毒力基因;采用antiSMASH v6.1.1和BAGEL4在线工具预测次级代谢产物和细菌素基因簇[35-36];通过BLASTP比对,在NCBI数据库中搜索与乳酸菌益生特性相关的基因。

1.9 数据处理

采用SPSS 20.0软件对试验数据进行单因素方差分析(one-way ANOVA)和Duncan氏法多重比较,结果以“平均值±标准差”形式表示,P<0.05为差异显著;采用GraphPad Prism 9软件作图。

2 结果与分析

2.1 5株乳酸菌的益生特性

2.1.1 抑菌性能

表1可知,副干酪乳酪杆菌XLK401对大肠杆菌CMCC(B)44102的抑制圈直径显著高于其他菌株(P<0.05),对金黄色葡萄球菌ATCC 6538的抑制圈直径显著高于除唾液联合乳杆菌05外的其他菌株(P<0.05);干酪乳酪杆菌AACE4和饲草联合乳杆菌AACE5对弗氏志贺氏菌BDS8的抑制圈直径显著高于其他菌株(P<0.05);饲草联合乳杆菌AACE5对肠道沙门氏菌CMCC(B)50094的抑制圈直径显著高于干酪乳酪杆菌AACE4(P<0.05)。
表1 5株乳酸菌对4种病原指示菌的抑菌圈直径

Table 1 Diameters of inhibition zones of five strains of lactic acid bacteria against four kinds of pathogenic indicator bacteriamm

项目
Items
大肠杆菌
CMCC(B)44102
Escherichia coli
CMCC(B)44102
金黄色葡萄
球菌ATCC 6538
Staphylococcus aureus
ATCC 6538
弗氏志贺氏菌BDS8
Shigella flexneri
BDS8
肠道沙门氏菌
CMCC(B)50094
Salmonella enterica
CMCC(B)50094
唾液联合乳杆菌05
Ligilactobacillus salivarius 05
21.36±0.11b 22.16±0.28ab 18.30±0.20b 17.43±0.41ab
嘉义乳酪杆菌AACE3
Lacticaseibacillus
chiayiensis AACE3
18.30±0.10d 20.10±0.17c 15.16±0.05c 17.46±0.30ab
副干酪乳酪杆菌XLK401
Lacticaseibacillus
paracasei XLK401
23.50±0.10a 23.33±0.32a 17.53±0.05b 17.60±0.20ab
干酪乳酪杆菌AACE4
Lacticaseibacillus casei AACE4
20.30±0.10c 21.30±0.30bc 20.40±0.17a 16.33±0.15b
饲草联合乳杆菌AACE5
Ligilactobacillus pabuli AACE5
19.56±0.15cd 21.23±0.15bc 19.36±0.20a 18.66±0.15a
PP-value <0.001 <0.001 <0.001 <0.001

同列数据肩标不同字母表示差异显著(P<0.05)。表2同。

Values in the same column with different letter superscripts indicated significant differences (P<0.05). The same as Table 2.

2.1.2 耐受性

表2可知,在0.3%胆盐处理4 h后,5株乳酸菌的存活率为60.41%~80.49%;其中,副干酪乳酪杆菌XLK401的存活率最高,显著高于除嘉义乳酪杆菌AACE3外的其他菌株(P<0.05);唾液联合乳杆菌05存活率最低,显著低于除饲草联合乳杆菌AACE5外的其他菌株(P<0.05)。这表明5株乳酸菌对胆盐的耐受能力存在差异,但均具备一定的耐受性。
表2 5株乳酸菌对模拟肠胃液及胆盐的耐受存活率

Table 2 Tolerance survival rates of five strains of lactic acid bacteria to simulated gastrointestinal fluids and bile salt%

项目
Items
3 h模拟胃液
3 h simulated
gastric fluid
4 h模拟肠液
4 h simulated
intestinal fluid
4 h 0.3%胆盐
4 h 0.3% bile salt
pH 2.0 pH 3.0 pH 4.0 pH 6.8 pH 6.8
饲草联合乳杆菌AACE5
Ligilactobacillus pabuli AACE5
50.21±1.23c 86.48±0.85bc 98.51±0.32b 99.89±0.08ab 61.27±1.56c
干酪乳酪杆菌AACE4
Lacticaseibacillus casei AACE4
86.80±1.12a 95.24±0.67a 99.12±0.25ab 100.00±0.00a 76.08±1.89b
副干酪乳酪杆菌XLK401
Lacticaseibacillus paracasei XLK401
81.26±1.05b 94.13±0.72a 98.94±0.28b 99.73±0.11b 80.49±2.01a
嘉义乳酪杆菌AACE3
Lacticaseibacillus chiayiensis AACE3
80.97±0.98b 87.65±0.81b 99.02±0.26b 99.86±0.09ab 78.29±1.95ab
唾液联合乳杆菌05
Ligilactobacillus salivarius 05
50.25±0.88c 85.48±0.88c 99.57±0.21a 100.00±0.00a 60.41±1.48c
PP-value <0.001 <0.001 0.009 0.006 <0.001
在人工模拟胃液处理3 h后,5株乳酸菌存活率随pH升高而整体上升。在pH为2.0条件下,干酪乳酪杆菌AACE4存活率最高(86.80%),显著高于其他菌株(P<0.05);在pH为3.0条件下,所有菌株的存活率均高于85%,其中干酪乳酪杆菌AACE4和副干酪乳酪杆菌XLK401存活率较高,显著高于其他菌株(P<0.05);在pH为4.0条件下,唾液联合乳杆菌05存活率最高(99.57%),显著高于除干酪乳酪杆菌AACE4外的其他菌株(P<0.05)。在人工模拟肠液(pH为6.8)处理4 h后,5株乳酸菌的存活率均高于99%,其中干酪乳酪杆菌AACE4和唾液联合乳杆菌05的存活率高达100%,显著高于副干酪乳酪杆菌XLK401(P<0.05)。以上结果表明,5株乳酸菌均表现出良好的胃肠液耐受能力。

2.1.3 表面特性

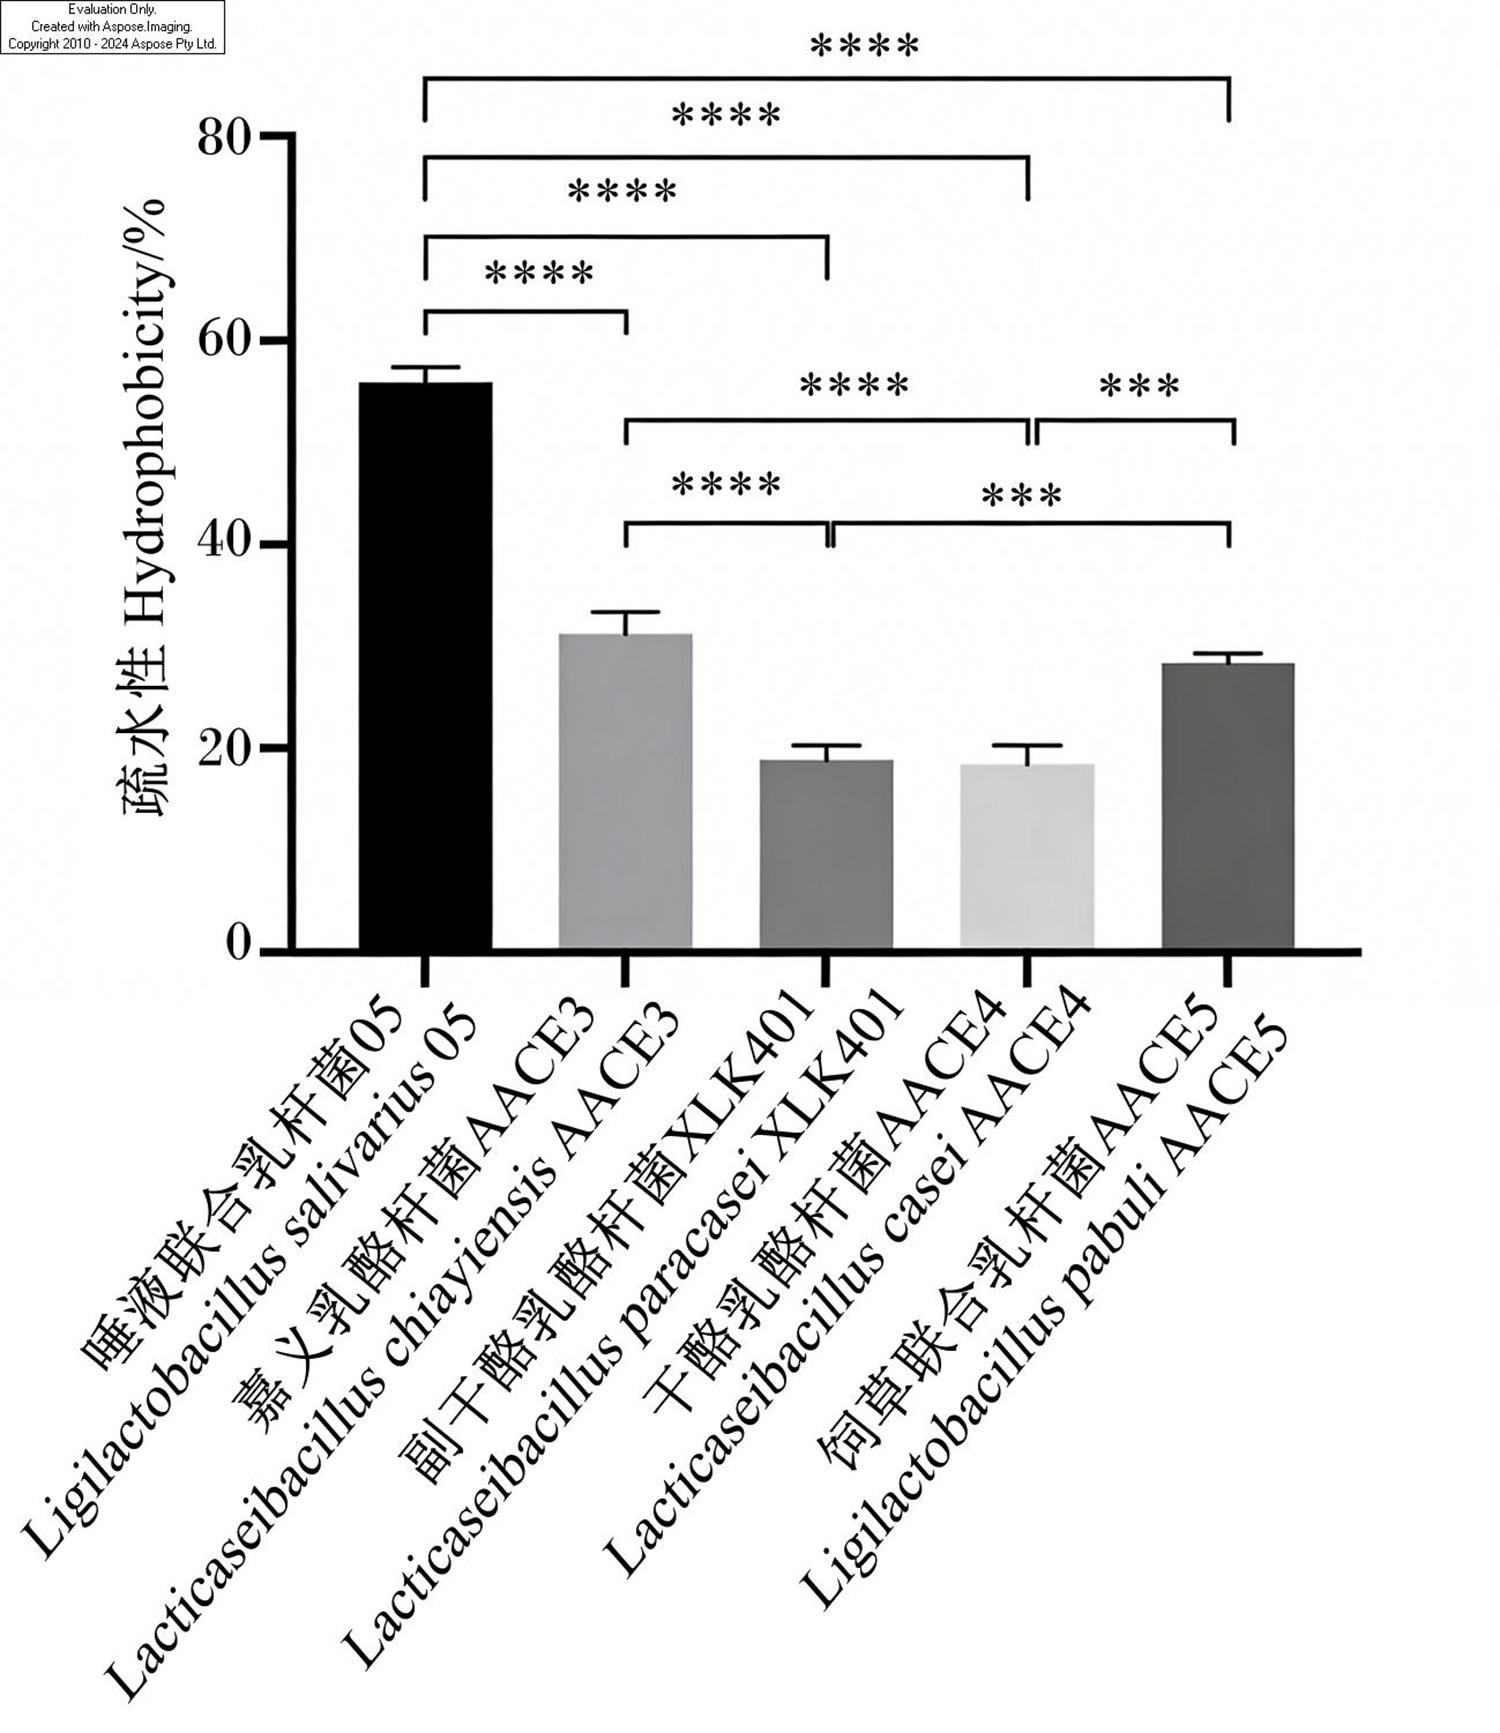
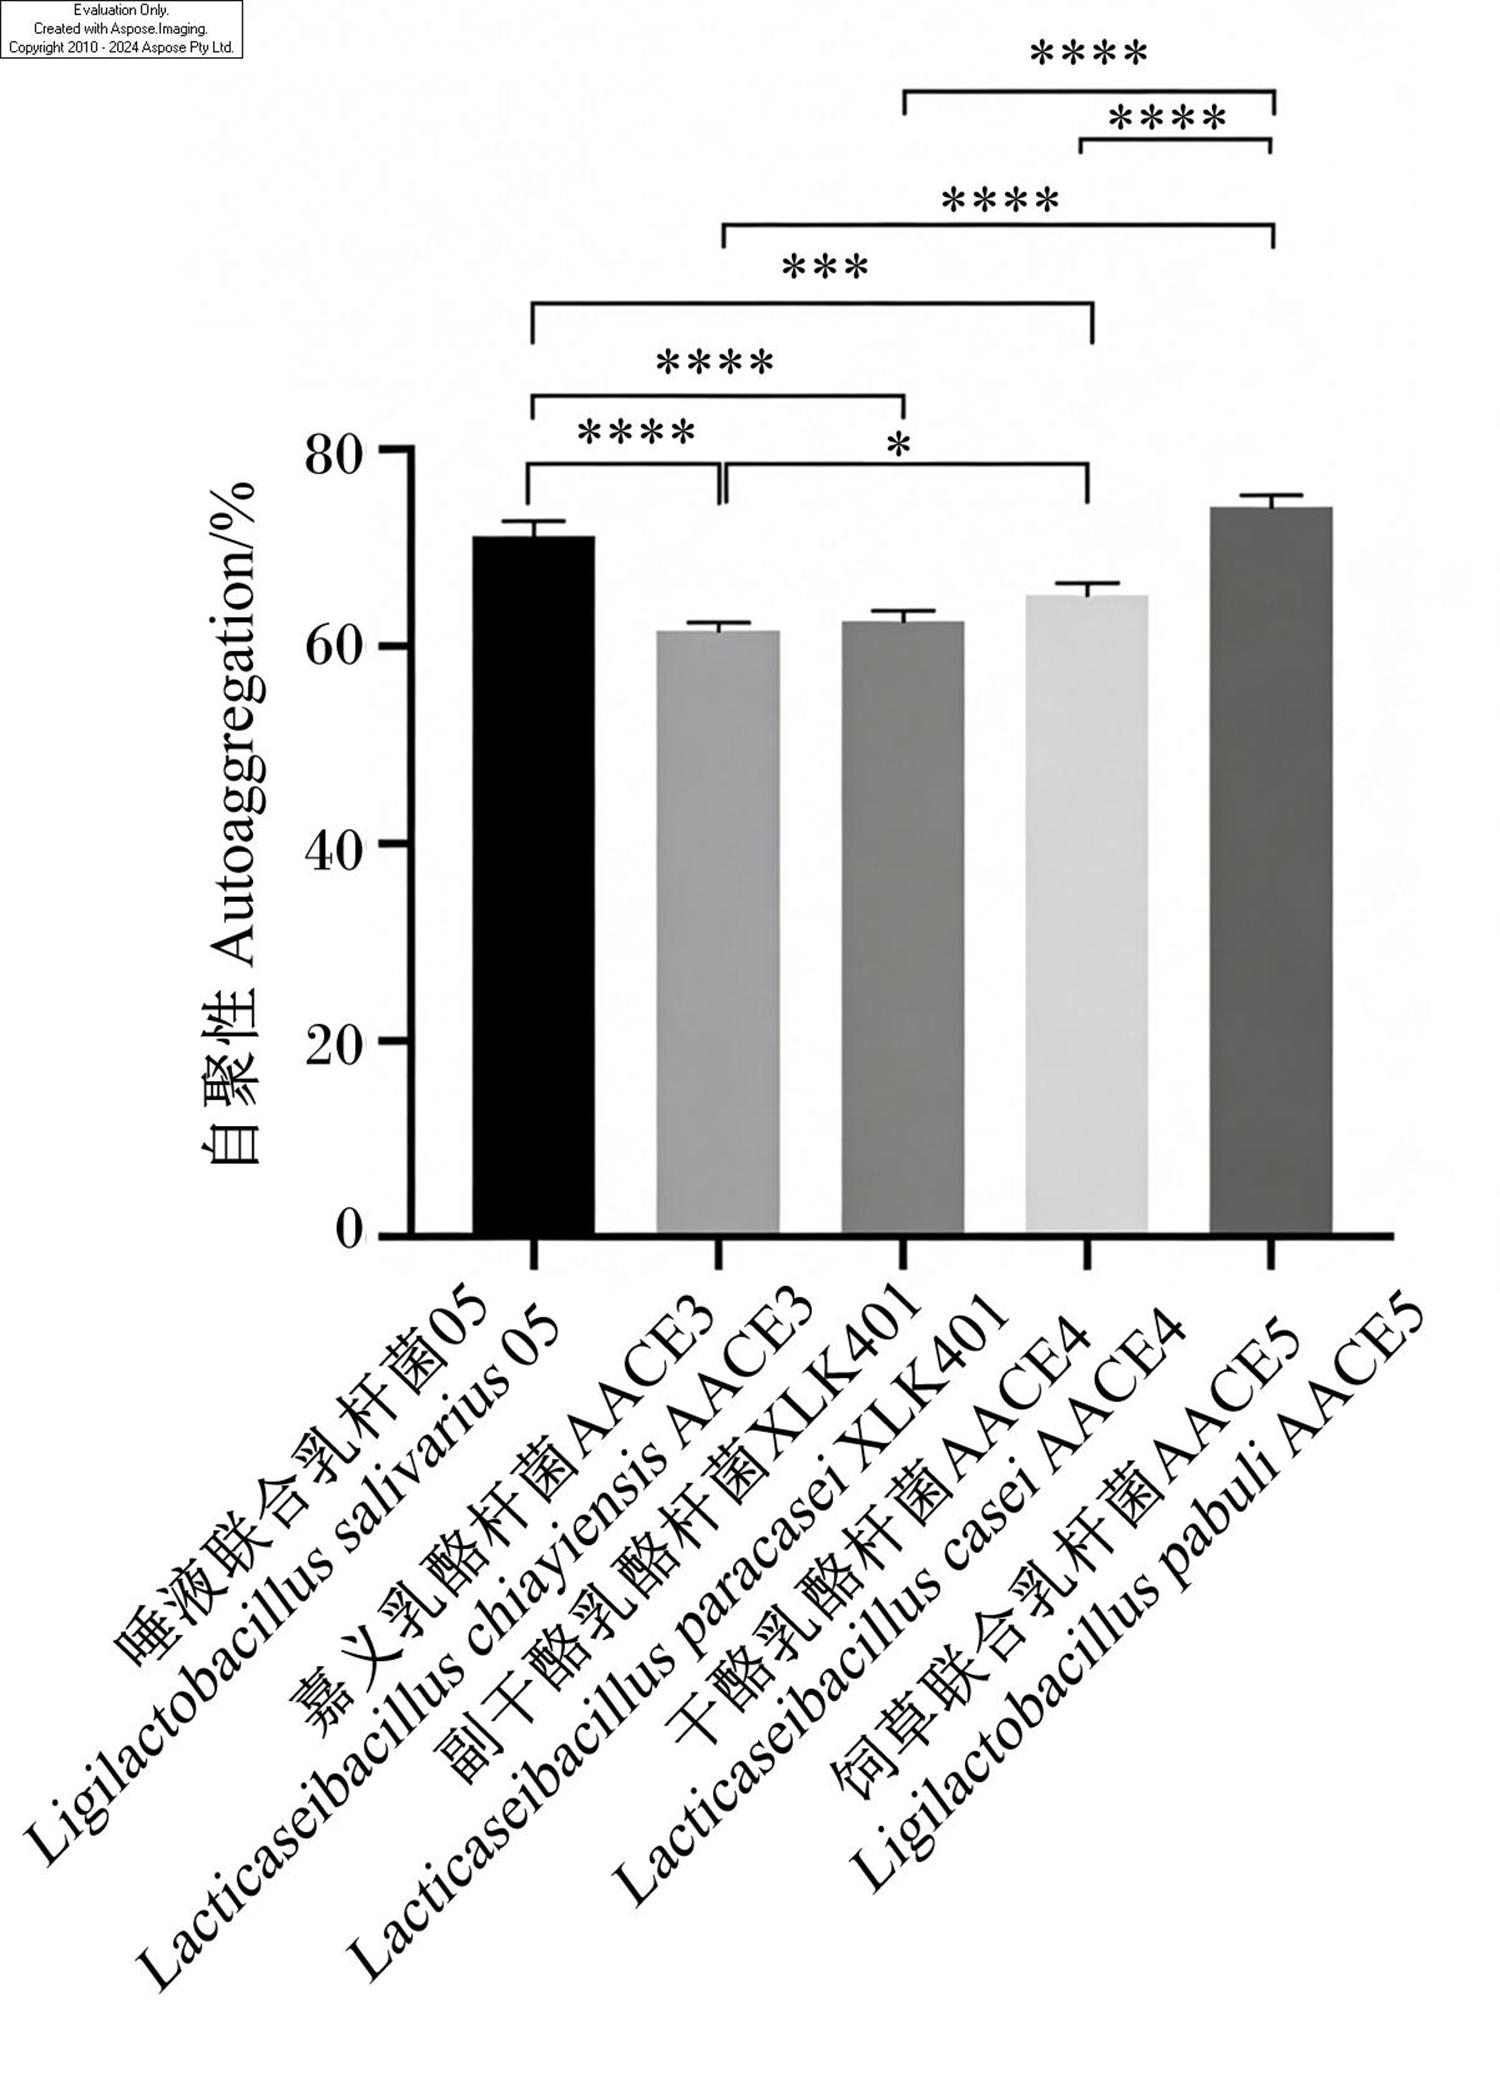
图1图2所示,5株乳酸菌中唾液联合乳杆菌05的疏水性最高(55.88%),显著高于其他菌株(P<0.05);饲草联合乳杆菌AACE5的自聚性最高(76.41%),显著高于除唾液联合乳杆菌05外的其他菌株(P<0.05)。结果表明,5株乳酸菌均具有一定的疏水性和自聚集能力。
图1 5株乳酸菌细胞表面疏水性比较

*表示P<0.05,**表示P<0.01,***表示P<0.001,****表示P<0.000 1。图2同。

Fig.1 Comparison of cell surface hydrophobicity of five strains of lactic acid bacteria

* mean P<0.05, ** mean P<0.01, *** mean P<0.001, and **** mean P<0.000 1. The same as Fig.2.

图2 5株乳酸菌自聚性比较

Fig.2 Comparison of autoaggregation of five strains of lactic acid bacteria

2.2 5株乳酸菌的安全性

2.2.1 溶血性

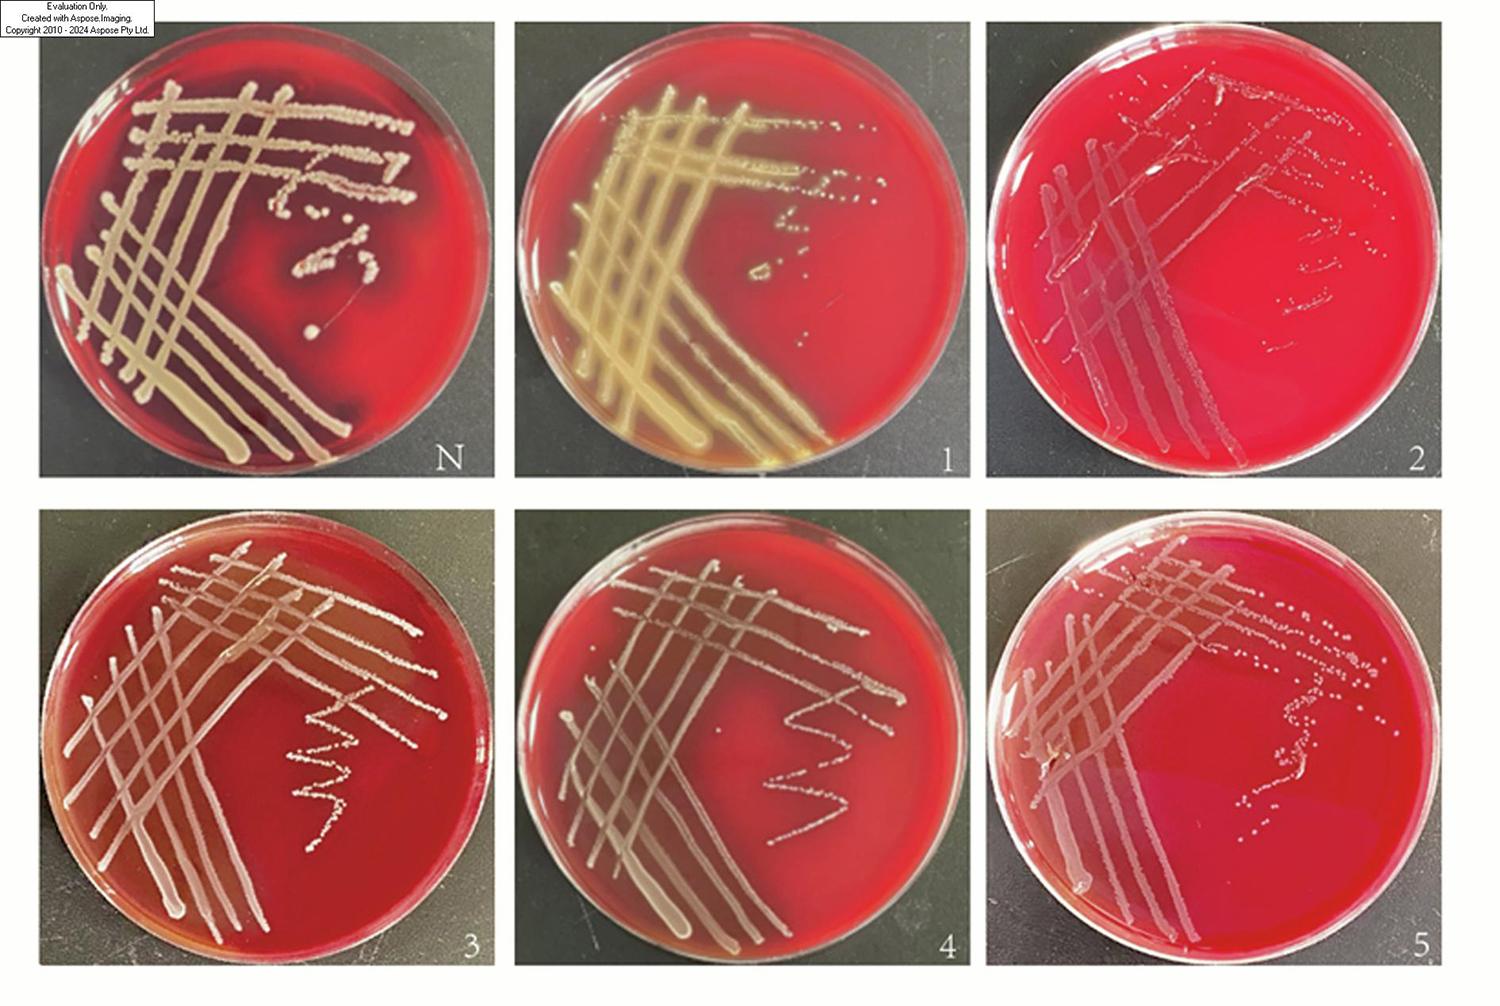
图3所示,5株乳酸菌菌落周围均无溶血圈形成,属于无毒性的γ溶血(不溶血);阳性对照金黄色葡萄球菌ATCC 6538则呈现出β溶血(完全溶血)。
图3 5株乳酸菌溶血活性检测

N:金黄色葡萄球菌ATCC 6538 Staphylococcus aureus ATCC 6538;1:唾液联合乳杆菌05 Ligilactobacillus salivarius 05;2:嘉义乳酪杆菌AACE3 Lacticaseibacillus chiayiensis AACE3;3:副干酪乳酪杆菌XLK401 Lacticaseibacillus paracasei XLK401;4:干酪乳酪杆菌AACE4 Lacticaseibacillus casei AACE4;5:饲草联合乳杆菌AACE5 Ligilactobacillus pabuli AACE5。

Fig.3 Detection of hemolytic activity of five strains of lactic acid bacteria

2.2.2 药敏试验分析

表3可知,5株乳酸菌对不同抗生素的敏感程度有所不同,除嘉义乳酪杆菌AACE3对四环素和多西环素有耐药性外,其余4株乳杆菌对绝大多数抗生素敏感或中度敏感。
表3 5株乳酸菌药敏试验结果

Table 3 Results of drug sensitivity test of five strains of lactic acid bacteria

抗生素
Antibiotics
唾液联合
乳杆菌05
Ligilactobacillus
salivarius 05
嘉义乳酪
杆菌AACE3
Lacticaseibacillus
chiayiensis AACE3
副干酪乳
酪杆菌XLK401
Lacticaseibacillus
paracasei XLK401
干酪乳酪
杆菌AACE4
Lacticaseibacillus
casei AACE4
饲草联合
乳杆菌AACE5
Ligilactobacillus
pabuli AACE5
青霉素 Penicillin S S S S I
诺氟沙星 Norfloxacin I I S S S
氨苄西林 Ampicillin S S I S S
头孢唑啉 Cefazolin S S S S S
庆大霉素 Gentamicin I I I I I
红霉素 Erythromycin I S S S S
环丙沙星 Ciprofloxacin I I I I I
氯霉素 Chloramphenicol S S S S S
四环素 Tetracycline I R S S I
多西环素 Doxycycline I R S I I

S表示敏感,抑菌圈直径>20 mm;I表示中度敏感,10 mm<抑菌圈直径≤20 mm;R表示耐药,抑菌圈直径≤10 mm。

S indicated susceptible, with inhibition zone diameter>20 mm; I indicated intermediate, with 10 mm<inhibition zone diameter≤20 mm; R indicated resistant, with inhibition zone diameter≤10 mm.

2.3 5株乳酸菌基因组基本特征

表4可知,经全基因组测序和组装后,5株乳酸菌基因组特征存在差异。其中,副干酪乳酪杆菌XLK401基因组最大(3.10 Mbp),唾液联合乳杆菌05基因组最小(1.92 Mbp);5株乳酸菌基因组GC含量为33.51%~47.17%;蛋白编码序列(coding sequence,CDS)数目分别为2 941(副干酪乳酪杆菌XLK401)、3 420(干酪乳酪杆菌AACE4)、2 758(嘉义乳酪杆菌AACE3)、2 429(饲草联合乳杆菌AACE5)和1 757个(唾液联合乳杆菌05);tRNA和rRNA数目分析结果表明,唾液联合乳杆菌05携带最多非编码RNA(78个tRNA+22个rRNA),而饲草联合乳杆菌AACE5携带最少非编码RNA(12个tRNA+1个rRNA);此外,所有菌株均检测到1个miscRNA。这些基因组特征为探究5株乳酸菌的遗传背景和功能特性奠定了遗传学基础。
表4 5株乳酸菌基因组基本特征

Table 4 Basic genomic characteristics of five strains of lactic acid bacteria

菌株
Strains
基因组大小
Genome
size/Mbp
GC含量
GC content/%
编码序
列数目
Number of
CDS/个
转运
RNA数目
Number of
tRNA/个
核糖体
RNA数目
Number of
rRNA/个
杂项RNA
数目
Number of
miscRNA/个
副干酪乳酪杆菌XLK401
Lacticaseibacillus paracasei XLK401
3.10 46.35 2 941 60 15 1
干酪乳酪杆菌AACE4
Lacticaseibacillus casei AACE4
3.09 46.66 3 420 61 15 1
嘉义乳酪杆菌AACE3
Lacticaseibacillus chiayiensis AACE3
2.86 47.17 2 758 58 15 1
饲草联合乳杆菌AACE5
Ligilactobacillus pabuli AACE5
2.49 36.76 2 429 12 1 1
唾液联合乳杆菌05
Ligilactobacillus salivarius 05
1.92 33.51 1 757 78 22 1

2.4 5株乳酸菌系统发育树分析

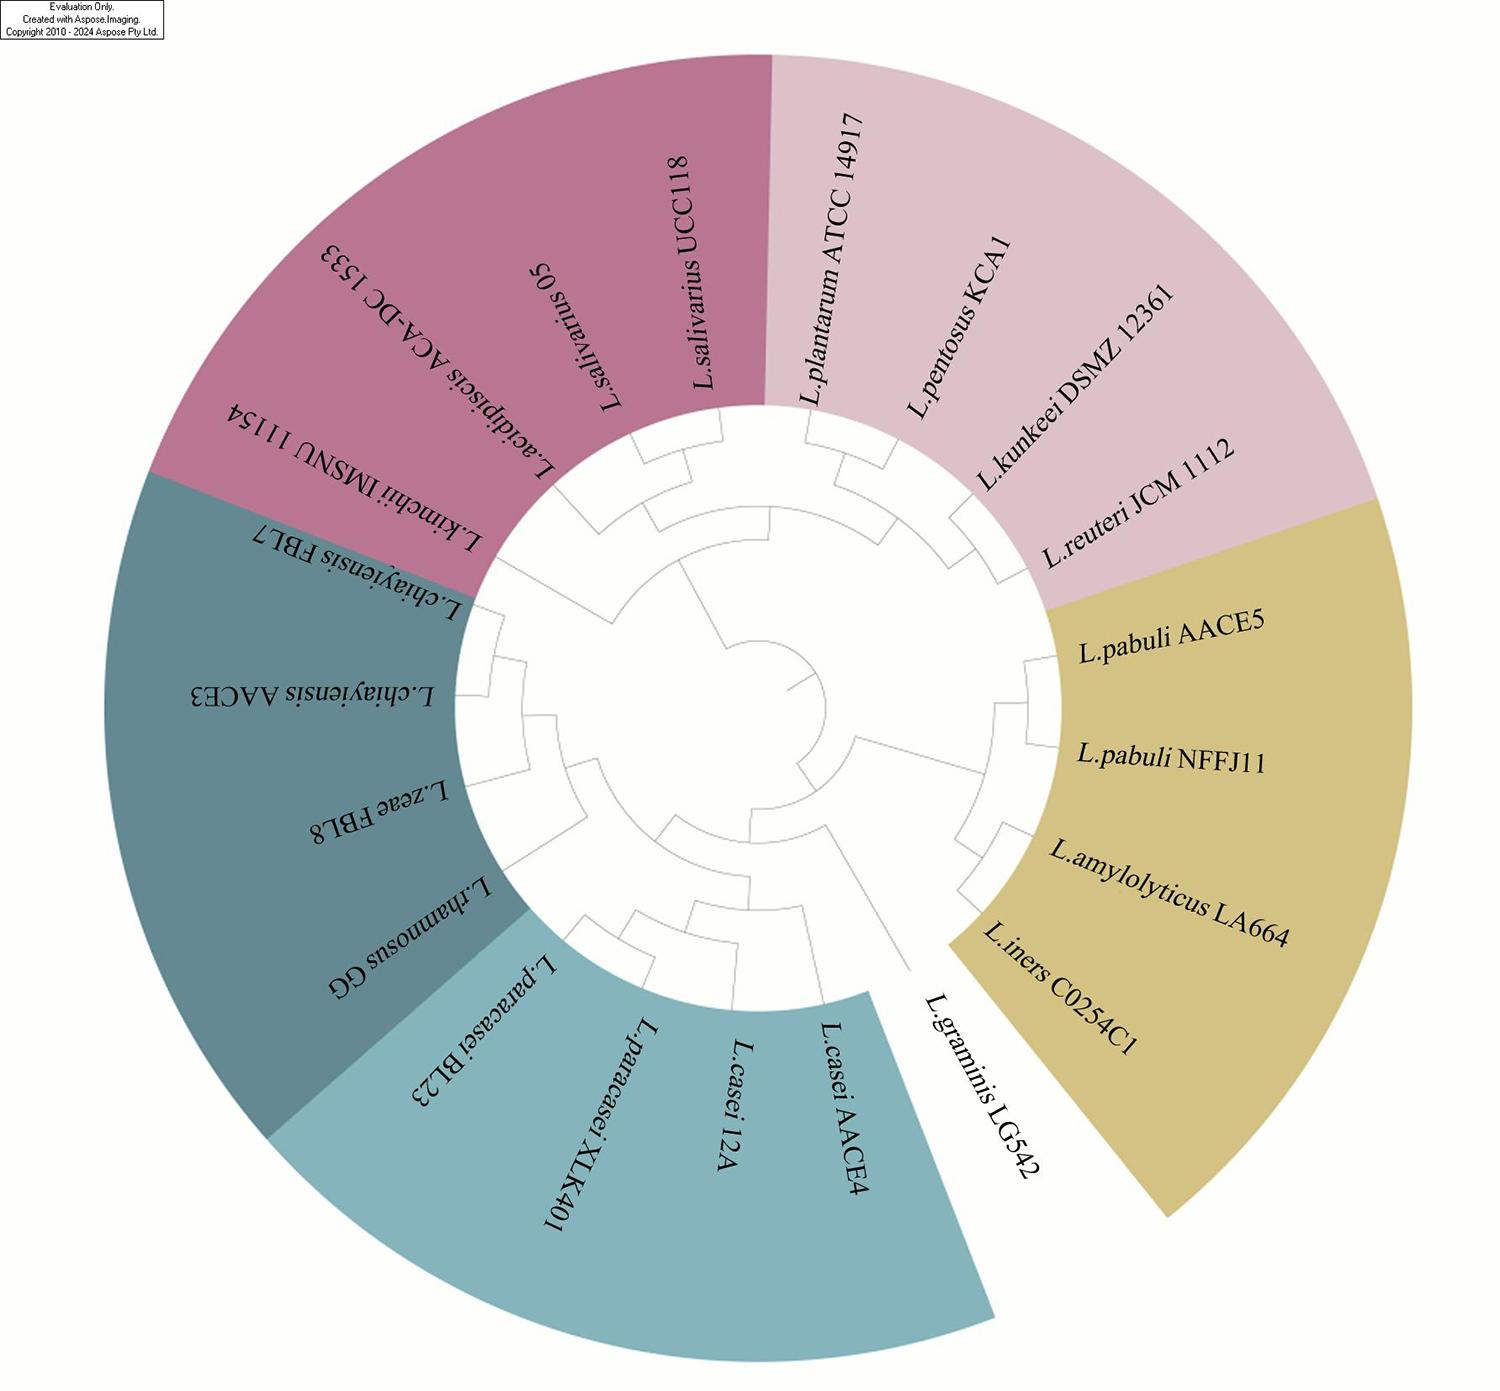
图4所示,基于核心基因序列构建的系统发育树显示,副干酪乳酪杆菌XLK401与干酪乳酪杆菌AACE4聚于同一分支,亲缘关系较近;唾液联合乳杆菌05、嘉义乳酪杆菌AACE3和饲草联合乳杆菌AACE5分别与唾液联合乳杆菌UCC118、嘉义乳酪杆菌FBL7和饲草联合乳杆菌NFFJ11处在同一分支,未聚合,表明这3株乳酸菌彼此间亲缘关系较远。
图4 基于核心基因序列构建的5株乳酸菌系统发育树

L.plantarum:植物乳植杆菌 Lactiplantibacillus plantarum;L.pentosus:戊糖乳植杆菌 Lactiplantibacillus pentosus;L.kunkeei;昆克乳杆菌 Lactobacillus kunkeei;L.reuteri:罗伊氏黏液乳杆菌 Limosilactobacillus reuteri;L.pabuli:饲草联合乳杆菌 Ligilactobacillus pabuli;L.amylolyticus:解淀粉乳杆菌 Lactobacillus amylolyticus;L.iners:惰性乳杆菌 Lactobacillus iners;L.graminis:草广泛乳杆菌 Latilactobacillus graminis;L.casei;干酪乳酪杆菌 Lacticaseibacillus casei;L.paracasei:副干酪乳酪杆菌 Lacticaseibacillus paracasei;L.rhamnosus:鼠李糖乳酪杆菌 Lacticaseibacillus rhamnosus;L.zeae:玉米乳酪杆菌 Lacticaseibacillus zeae;L.chiayiensis:嘉义乳酪杆菌 Lacticaseibacillus chiayiensis;L.kimchii:泡菜乳杆菌 Lactobacillus kimchii;L.acidipiscis:酸鱼联合乳杆菌 Ligilactobacillus acidipiscis;L.salivarius:唾液联合乳杆菌 Ligilactobacillus salivarius

Fig.4 Phylogenetic tree of five strains of lactic acid bacteria constructed based on core gene sequences

2.5 5株乳酸菌基因组功能基因注释

2.5.1 核心基因和特有基因分析

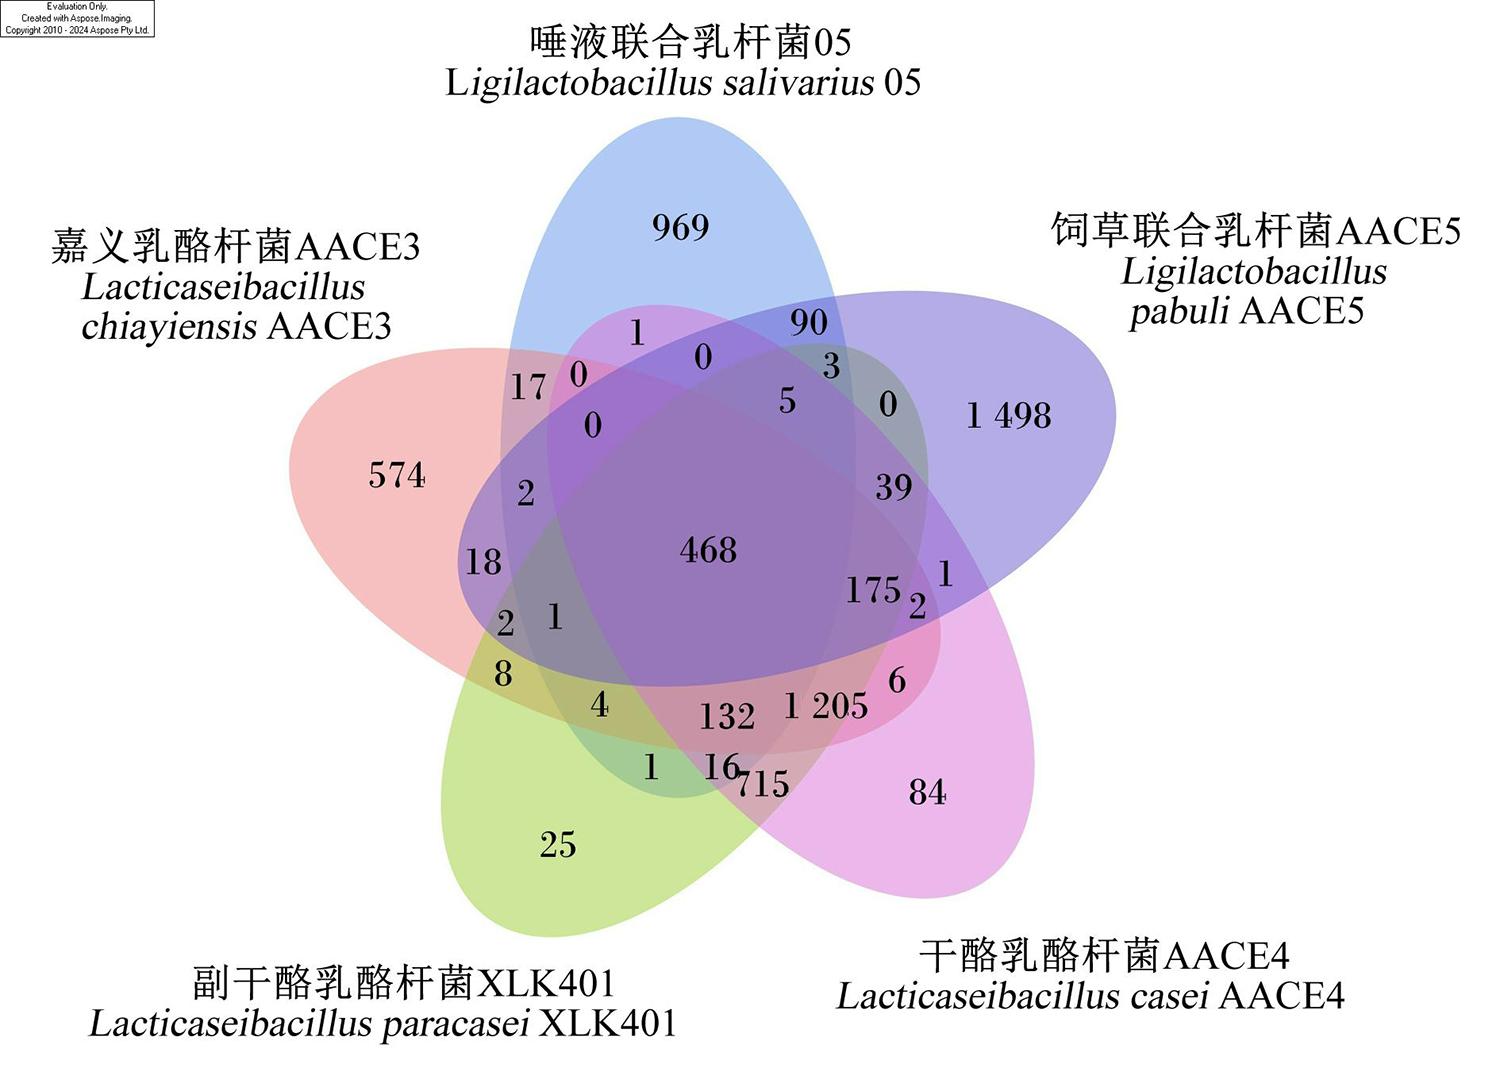
泛基因组分析可有效揭示菌株间的遗传差异,对5株乳酸菌开展泛基因组分析,结果如图5所示,泛基因组共有6 061个基因,其中核心基因468个,附属基因5 593个;此外,5株乳酸菌特有基因数量依次为969(唾液联合乳杆菌05)、574(嘉义乳酪杆菌AACE3)、25(副干酪乳酪杆菌XLK401)、84(干酪乳酪杆菌AACE4)和1 498个(饲草联合乳杆菌AACE5)。
图5 5株乳酸菌泛基因组和特有基因韦恩图

Fig.5 Venn diagram of pan-genome and specific genes of five strains of lactic acid bacteria

2.5.2 COG注释结果

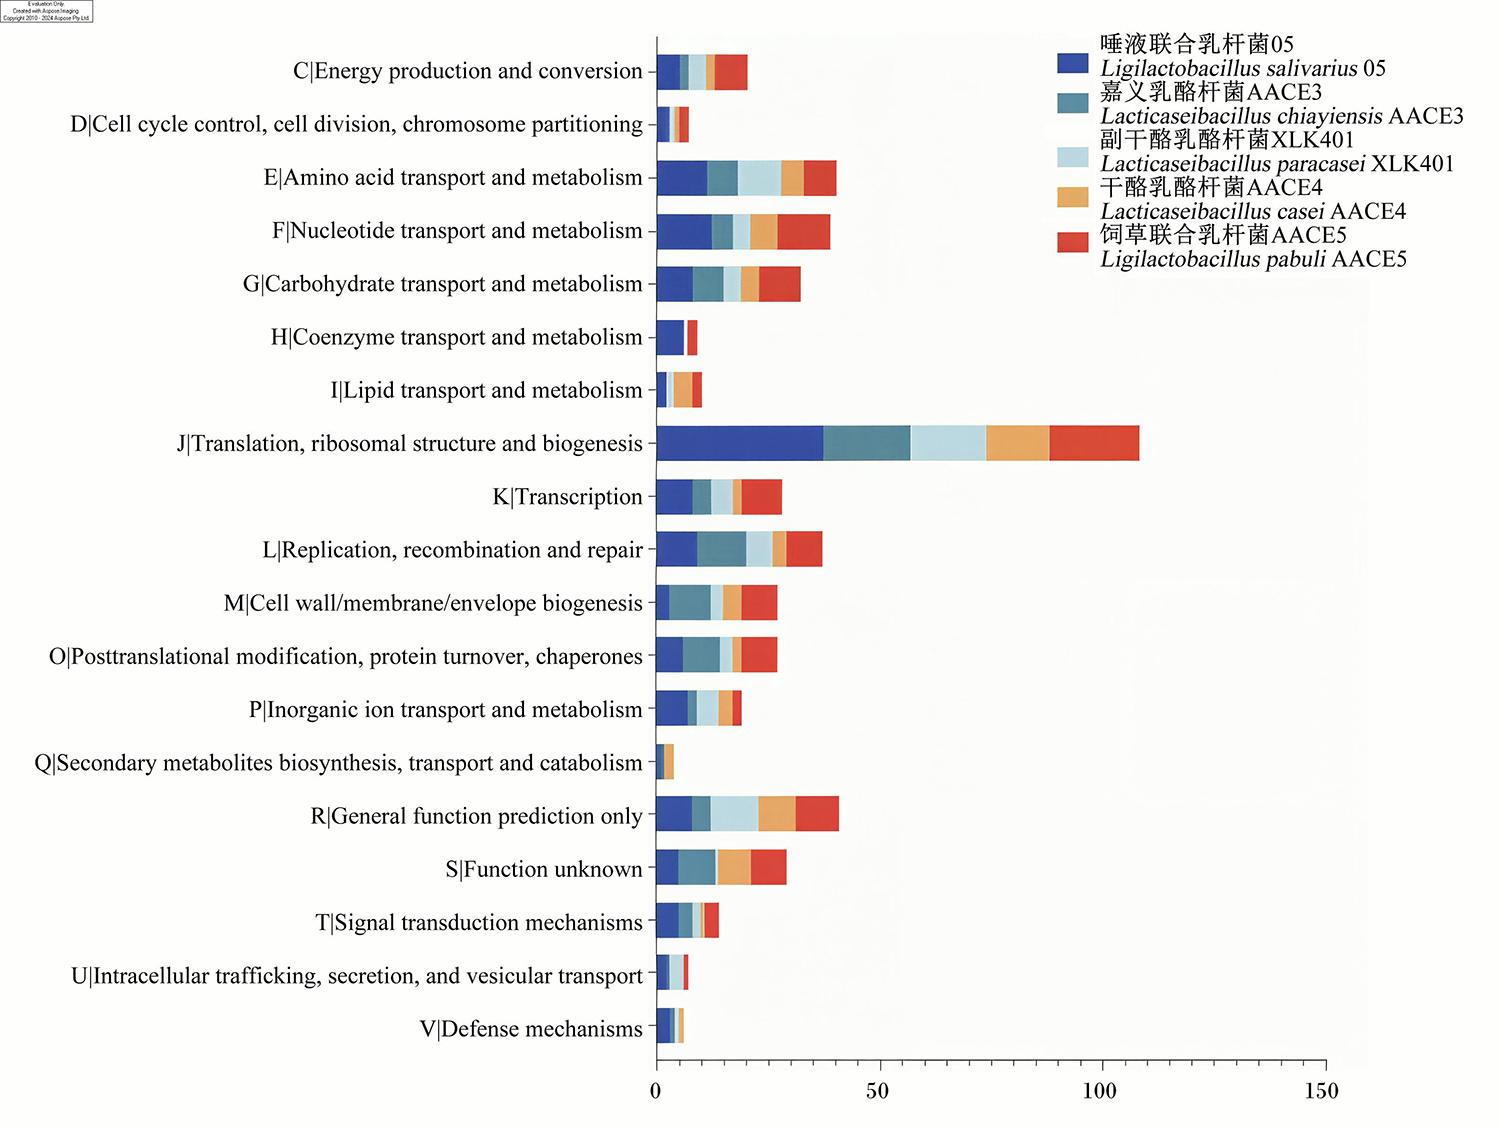
本研究借助COG数据库对5株乳酸菌核心基因进行功能注释和归类(图6),结果显示,468个核心基因被划分为19个COG功能类别,其中多数核心基因主要富集于翻译、核糖体结构和生物发生,氨基酸转运与代谢,碳水化合物转运与代谢,以及复制、重组和修复等基础生命过程。
图6 5株乳酸菌核心基因COG注释

Energy production and conversion:能量产生与转换;Cell cycle control, cell division, chromosome partitioning:细胞周期控制、细胞分裂、染色体分离;Amino acid transport and metabolism:氨基酸转运与代谢;Nucleotide transport and metabolism:核苷酸转运与代谢;Carbohydrate transport and metabolism:碳水化合物转运与代谢;Coenzyme transport and metabolism:辅酶转运与代谢;Lipid transport and metabolism:脂质转运与代谢;Translation, ribosomal structure and biogenesis:翻译、核糖体结构和生物发生;Transcription:转录;Replication, recombination and repair:复制、重组和修复;Cell wall/membrane/envelope biogenesis:细胞壁/膜/被膜生物发生;Posttranslational modification, protein turnover, chaperones:翻译后修饰、蛋白质周转、分子伴侣;Inorganic ion transport and metabolism:无机离子转运与代谢;Secondary metabolites biosynthesis, transport and catabolism:次生代谢物生物合成、转运与分解代谢;General function prediction only:仅预测通用功能;Function unknown:功能未知;Signal transduction mechanisms:信号转导机制;Intracellular trafficking, secretion, and vesicular transport:细胞内运输、分泌和囊泡运输);Defense mechanisms:防御机制。图7同 the same as Fig.7

Fig.6 COG annotation of core genes of five strains of lactic acid bacteria

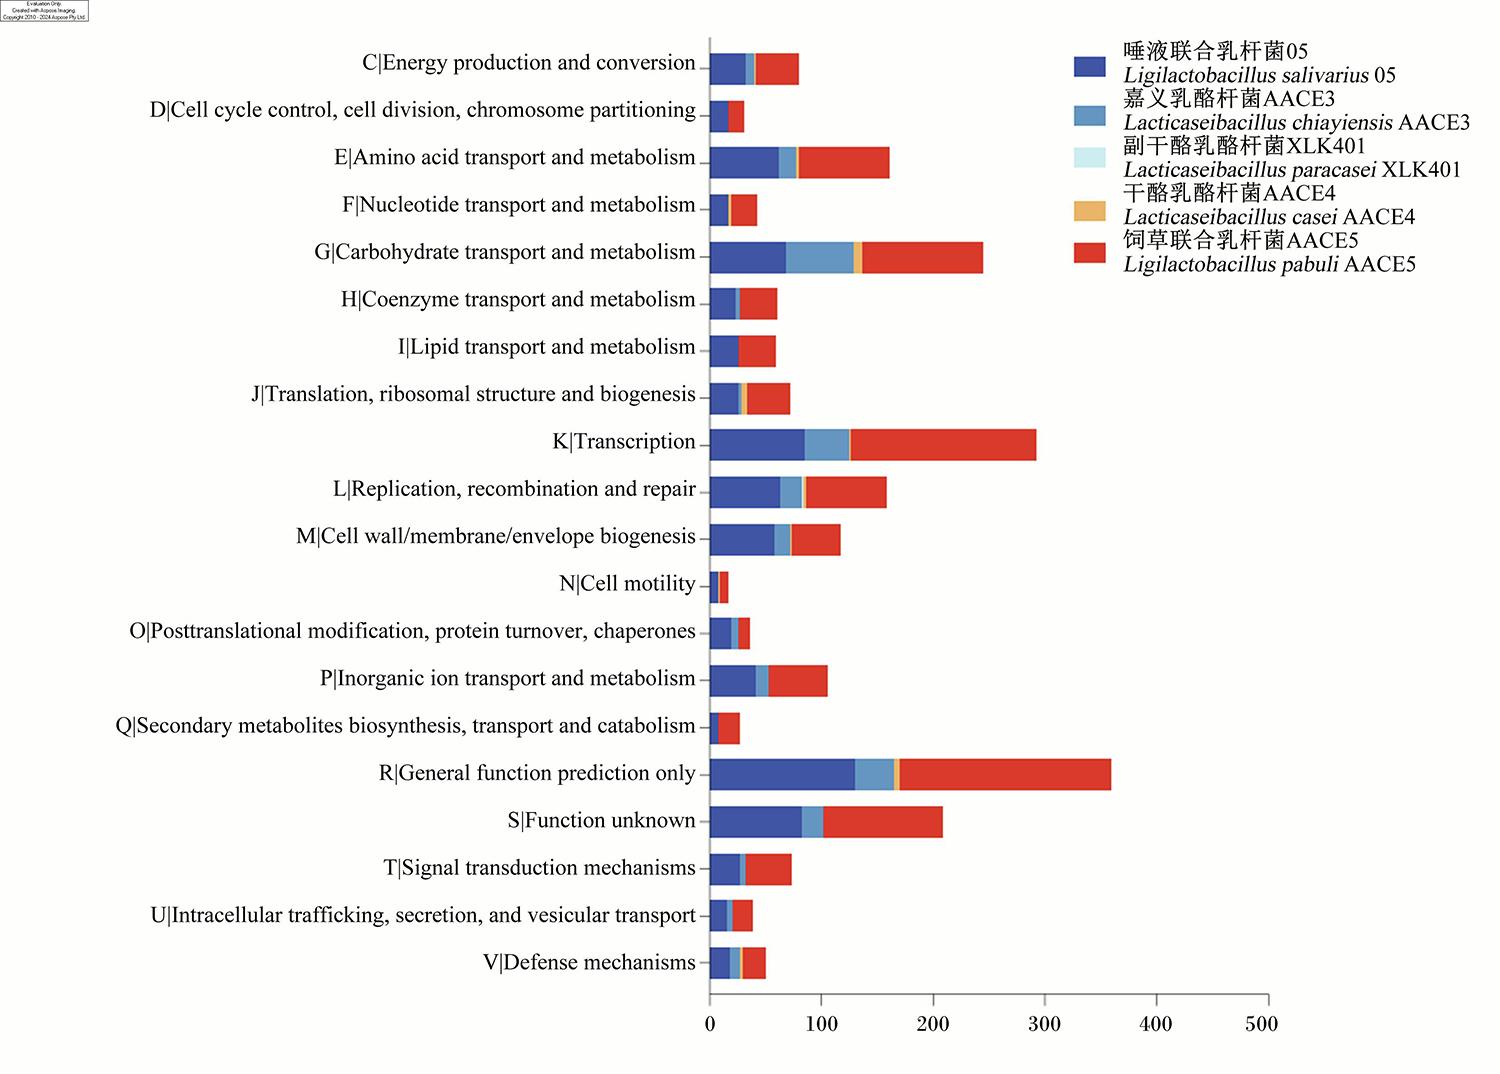
本研究借助COG数据库对5株乳酸菌特有基因进行功能注释和归类(图7),结果显示,唾液联合乳杆菌05特有基因中85个主要涉及转录功能;嘉义乳酪杆菌AACE3特有基因中61个主要参与碳水化合物转运和代谢;副干酪乳酪杆菌XLK401特有基因中仅1个被注释为与复制、重组和修复相关;干酪乳酪杆菌AACE4特有基因中7个主要涉及碳水化合物转运与代谢;饲草联合乳杆菌AACE5特有基因中109个主要与碳水化合物转运与代谢相关。
图7 5株乳酸菌特有基因COG注释

Cell motility:细胞运动。

Fig.7 COG annotation of specific genes of five strains of lactic acid bacteria

2.5.3 抗生素耐药基因及毒力基因分析

表5可知,唾液联合乳杆菌05携带3个耐药基因,分别为1个林可酰胺类、链阳霉素B耐药基因和2个四环素类抗生素耐药基因,未检测到万古霉素类抗生素耐药基因;副干酪乳酪杆菌XLK401携带1个大环内酯类抗生素耐药基因;干酪乳酪杆菌AACE4携带1个氨基糖苷类抗生素耐药基因;嘉义乳酪杆菌AACE3携带1个四环素类抗生素耐药基因;饲草联合乳杆菌AACE5未发现相似性超过90%的耐药基因。本试验在5株乳酸菌中均未检测到毒力基因。
表5 基于ARDB数据库的5株乳酸菌抗生素耐药基因注释

Table 5 Annotation of antibiotic resistance genes of five strains of lactic acid bacteria based on ARDB database

菌株
Strains
基因编号
Gene ID
预测抗生素耐药类别
Predicted antibiotic
resistance category
相似性
Similarity/%


唾液联合乳杆菌05
Ligilactobacillus salivarius 05
GL001735 林可酰胺类、链阳菌素B 99.60
GL001755 四环素类抗生素 95.60
GL001756 四环素类抗生素 98.50
副干酪乳酪杆菌XLK401
Lacticaseibacillus paracasei XLK401
assembly_01760 大环内酯类抗生素 100.00
干酪乳酪杆菌AACE4
Lacticaseibacillus casei AACE4
assembly_01758 氨基糖苷类抗生素 90.91
嘉义乳酪杆菌AACE3
Lacticaseibacillus chiayiensis AACE3
assembly_01524 四环素类抗生素 100.00
饲草联合乳杆菌AACE5
Ligilactobacillus pabuli AACE5

2.5.4 细菌基因簇分析

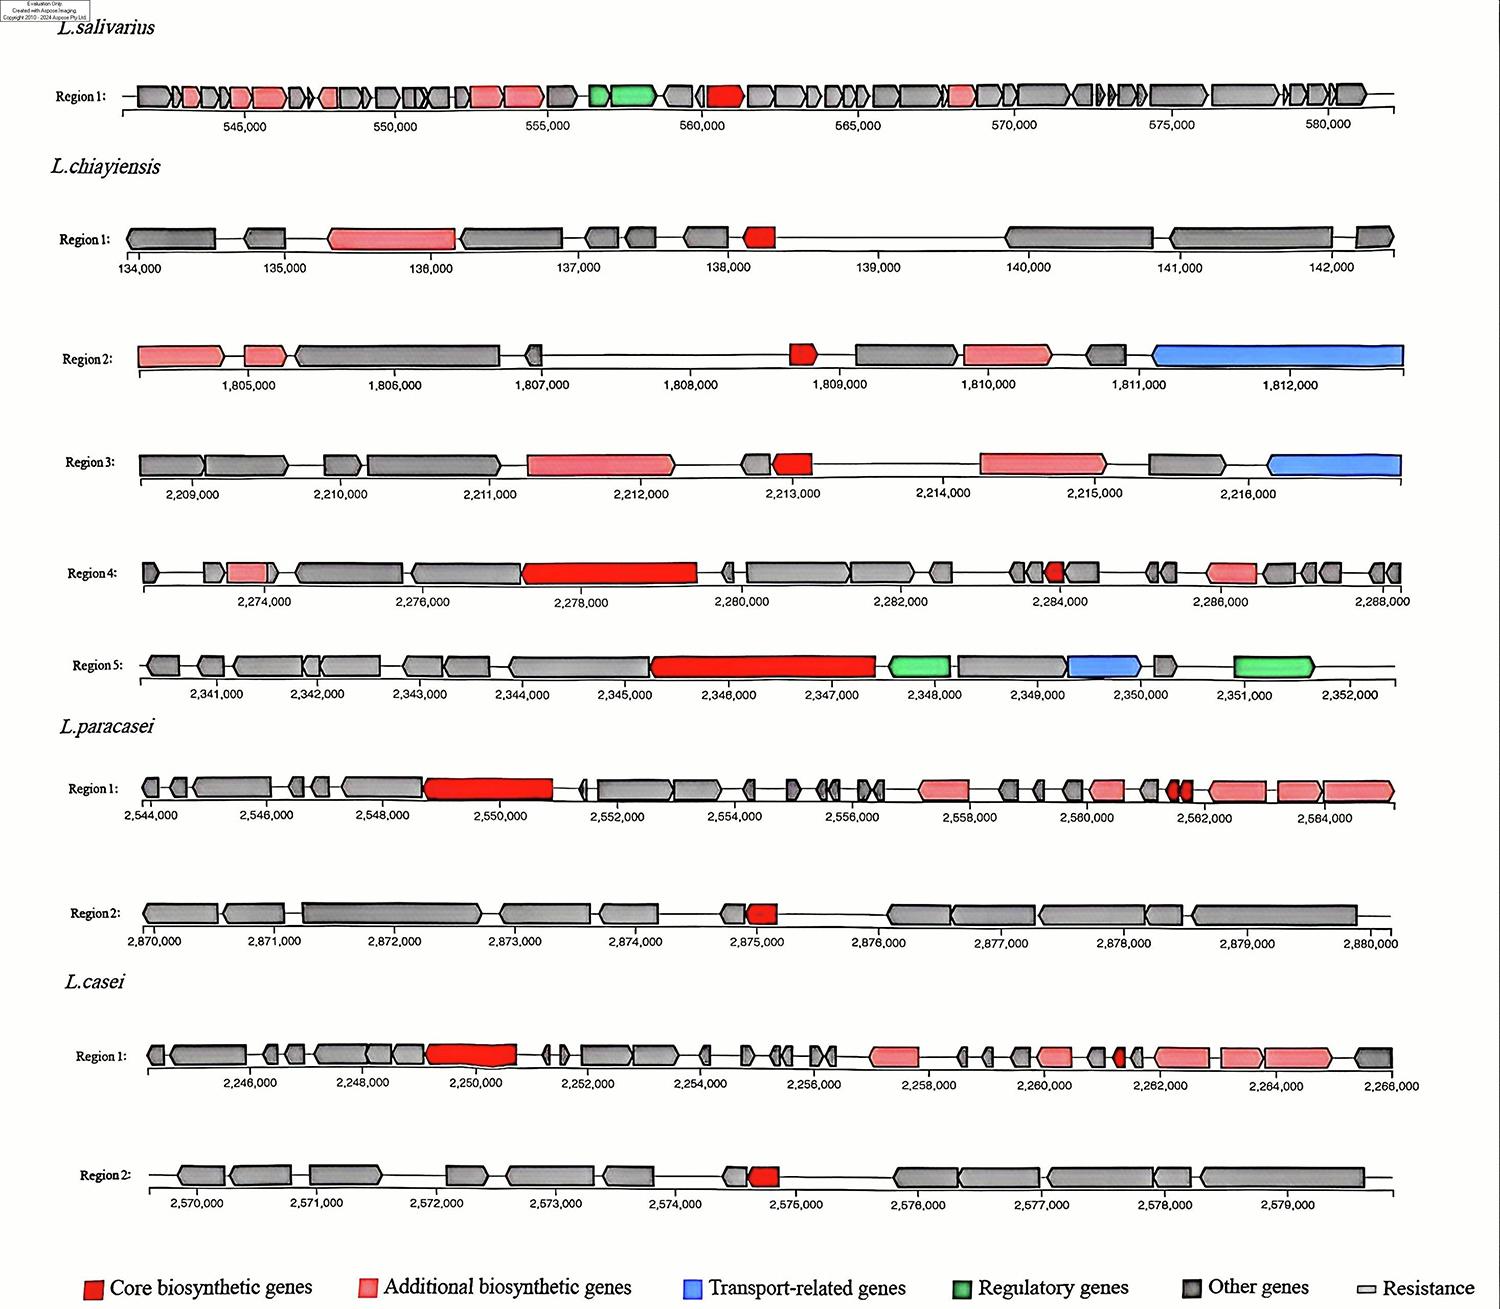
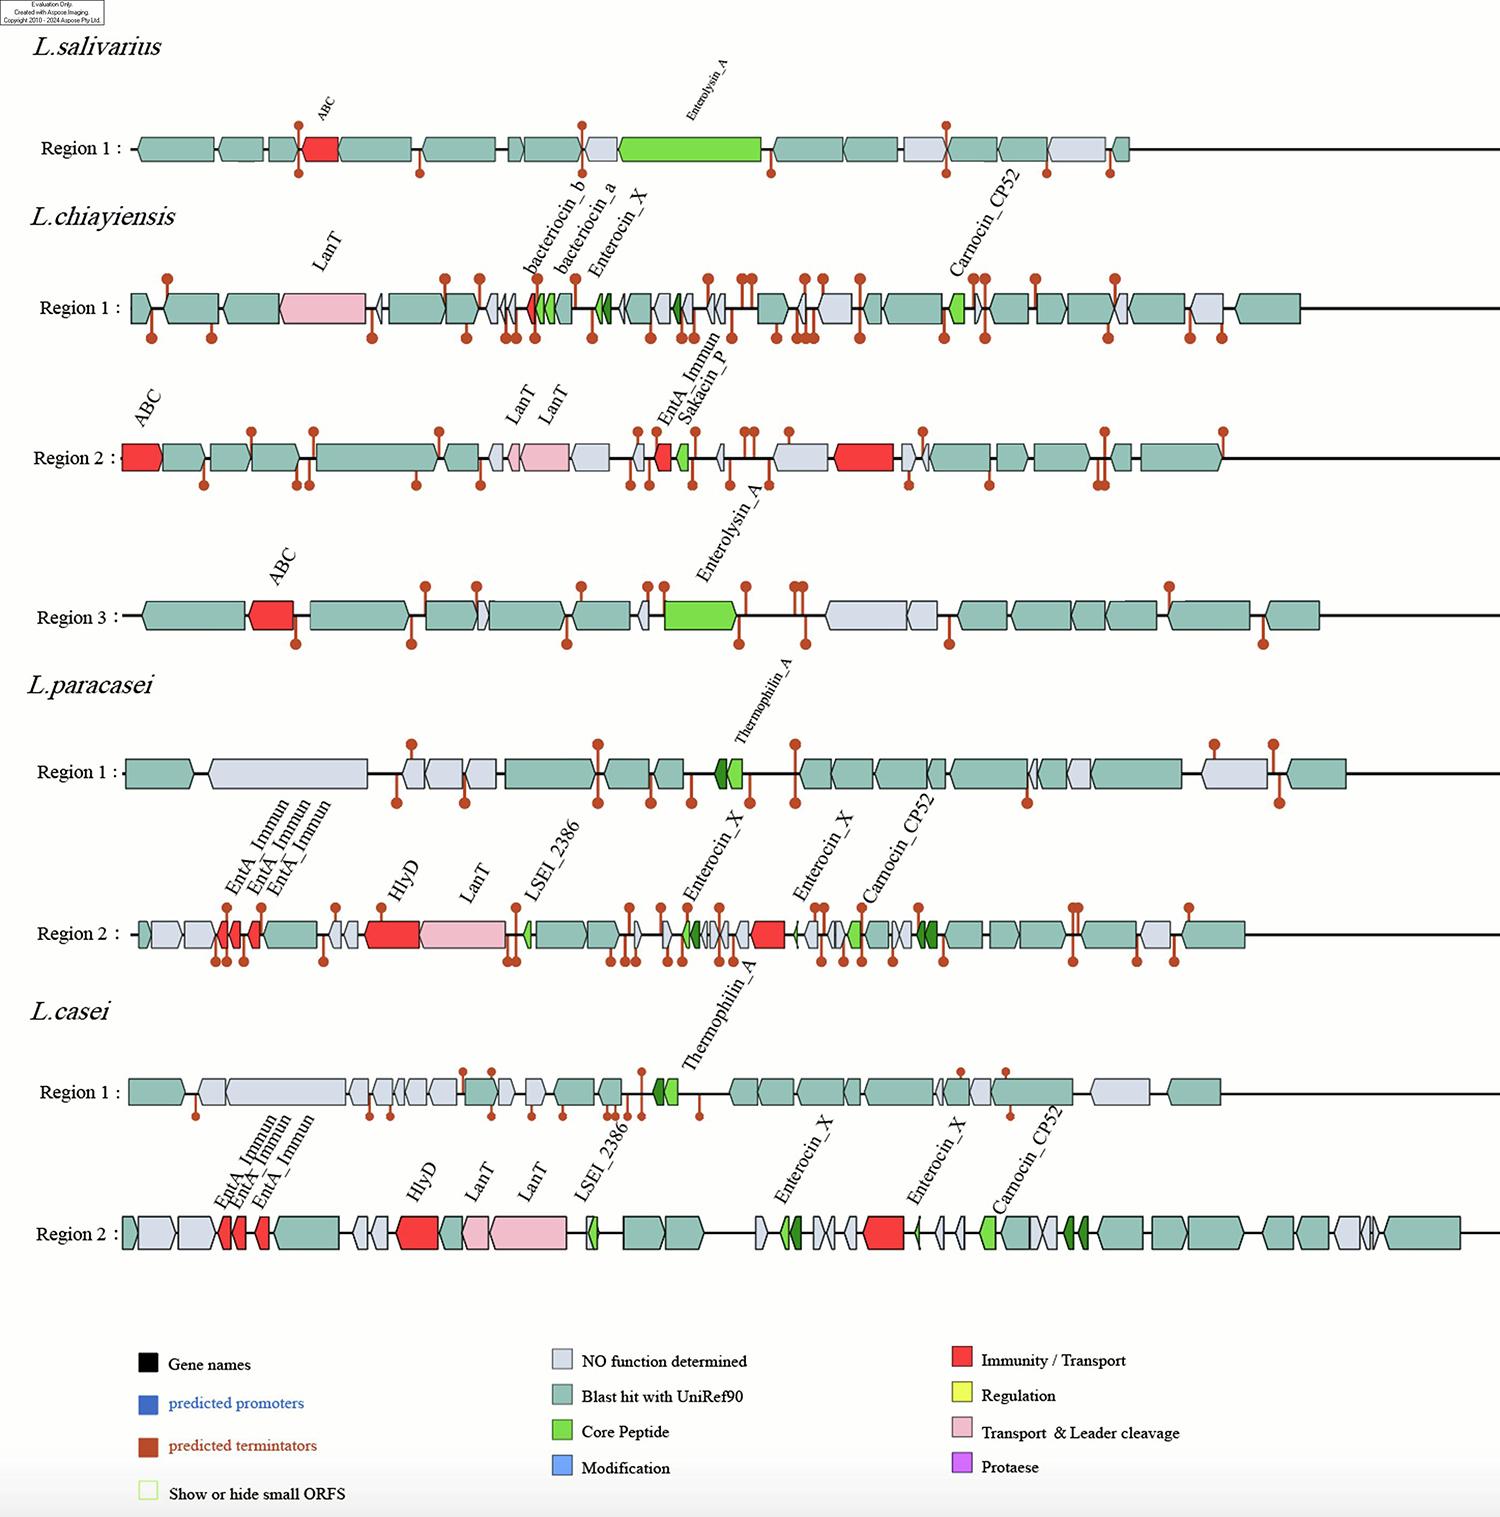
基于antiSMASH和BAGEL4分析,不同菌株的生物合成基因簇特征如图8图9所示。综合2个数据库的预测结果:唾液联合乳杆菌05共预测到2条基因簇,核心分别为Ⅲ型聚酮合酶(type Ⅲ polyketide synthase,T3PKS)和肠溶素A(enterolysin A),其中T3PKS广泛存在于细菌、真菌和植物中,具有抑菌和抗肿瘤活性;嘉义乳酪杆菌AACE3共预测到8条基因簇,核心包括细菌素样肽(bacteriocin-like peptide,Blp)家族Ⅱ类、sakacin P、肠溶素A和肠球菌素X(enterocin X),其中Blp家族Ⅱ类细菌素对肠球菌和化脓性链球菌具有广谱活性;副干酪乳酪杆菌XLK401共预测到4条基因簇,核心包括2条Ⅱ类细菌素(b和c)、肠球菌素X和卡诺菌素(carnocin);干酪乳酪杆菌AACE4与副干酪乳酪杆菌XLK401基因簇类型相近,包括以Ⅱ类细菌素(b和c)、Blp家族Ⅱ类及卡诺菌素为主的4条基因簇;2个数据库中均未发现饲草联合乳杆菌AACE5的基因簇。此外,乳酸菌除了生成细菌素抑制病原菌外,还可通过分泌过氧化氢等次级代谢产物发挥抑菌作用。
图8 5株乳酸菌次级代谢产物基因簇预测结果(antiSMASH)

L.salivarius:唾液联合乳杆菌05 Ligilactobacillus salivarius 05;L.chiayiensis:嘉义乳酪杆菌AACE3 Lacticaseibacillus chiayiensis AACE3;L.paracasei:副干酪乳酪杆菌XLK401 Lacticaseibacillus paracasei XLK401;L.casei:干酪乳酪杆菌AACE4 Lacticaseibacillus casei AACE4。图9同 the same as Fig.9

Region:区域;Core biosynthetic genes:核心生物合成基因;Additional biosynthetic genes:附加生物合成基因;Transport-related genes:转运相关基因;Regulatory genes:调控基因;Other genes:其他基因;Resistance:抗性。

Fig.8 Prediction results of secondary metabolite gene clusters in five strains of lactic acid bacteria (antiSMASH)

图9 5株乳酸菌细菌素基因簇预测结果(BAGEL4)

Region:区域;Gene names:基因名称;predicted promoters:预测启动子;predicted terminators:预测终止子;Show or hide small ORFs:展示或隐藏小开放阅读框;No function determined:未确定功能;Blast hit with UniRef90:UniRef90中BLAST比对命中;Core Peptide:核心肽;Modification:修饰;Immunity/Transport:免疫/转运;Regulation:调控;Transport & Leader cleavage:转运与前导肽切割;Protease:蛋白酶;ABC:ATP结合盒转运蛋白 ATP-binding cassette transporter;Enterolysin_A:肠溶素A;LanT:羊毛硫细菌素转运蛋白 lantibiotic transport protein;bacteriocin:细菌素;Enterocin_X:肠球菌素X;Carnocin_CP52:卡诺菌素CP52;EntA_Immun:肠球菌素A免疫蛋白 enterocin A immunity protein;Thermophilin_A:嗜热链球菌素A;HlyD:溶血素D型分泌蛋白hemolysin D-type secretion protein。

Fig.9 Prediction results of bacteriocin gene clusters in five strains of lactic acid bacteria (BAGEL4)

表6可知,副干酪乳酪杆菌XLK401基因组编码42个糖苷水解酶(glycoside hydrolase,GH),包括8个GH13家族淀粉水解酶(可切割α-1,4-糖苷键连接的寡糖或多糖),8个GH1和GH2家族酶(能催化多糖中1,4-糖苷键裂解),5个GH25家族溶菌酶[能特异性水解细菌细胞壁肽聚糖中N-乙酰胞壁酸(NAM)与N-乙酰氨基葡萄糖(NAG)之间的β-1,4-糖苷键,参与细菌细胞壁降解、自身细胞分裂和形态维持,同时还能在肠道环境中发挥抑菌、调控菌群稳态的作用];此外,还编码27个糖基转移酶(glycosyl transferase,GT),包含10个GT2家族酶和8个GT4家族酶,如纤维素合成酶、几丁质合成酶等。唾液联合乳杆菌05基因组编码19个GH、26个GT、0个多糖裂解酶(polysaccharide lyase,PL)、2个碳水化合物酯酶(carbohydrate esterase,CE)、0个辅助活性酶(auxiliary activity,AA)和9个碳水化合物结合模块(carbohydrate-binding module,CBM)。干酪乳酪杆菌AACE4基因组编码44个GH、30个GT、2个PL、4个CE、1个AA和1个CBM。嘉义乳酪杆菌AACE3基因组编码50个GH、22个GT、1个PL、8个CE、1个AA和1个CBM。饲草联合乳杆菌AACE5基因组编码639个GH、19个GT、1个PL、4个CE、1个AA和0个CBM,其中GH数量明显高于其他4株菌,表明其具有广泛的碳水化合物分解能力,能够降解多种复杂的碳水化合物。
表6 5株乳酸菌碳水化合物活性酶注释结果

Table 6 Annotation results of carbohydrate-active enzymes of five strains of lactic acid bacteria

CAZy数据库类别
CAZy database
categories
饲草联合
乳杆菌AACE5
Ligilactobacillus
pabuli AACE5
嘉义乳酪
杆菌AACE3
Lacticaseibacillus
chiayiensis AACE3
干酪乳
酪杆菌AACE4
Lacticaseibacillus
casei AACE4
副干酪乳酪
杆菌XLK401
Lacticaseibacillus
paracasei XLK401
唾液联合
乳杆菌05
Ligilactobacillus
salivarius 05
糖苷水解酶类
Glycoside hydrolases
639 50 44 42 19
糖基转移酶类
Glycosyl transferases
19 22 30 27 26
多糖裂解酶类
Polysaccharide lyases
1 1 2 2 0
碳水化合物酯酶类
Carbohydrate esterases
4 8 4 8 2
辅助活性酶类
Auxiliary activities
1 1 1 2 0
碳水化合物结合模块
Carbohydrate-binding modules
0 1 1 1 9

2.5.5 益生基因分析

表7可知,5株乳酸菌基因组中存在多种与益生特性相关的基因,包括耐酸性相关基因(dltAclpX)、抗热基因(dnaJdnaKgrpEhslO)、抗氧化基因(TpxtrxAPox5)和黏附相关基因(fbpluxStuf)等,这些基因共同增强菌株在消化道中的存活和定植能力。值得注意的是,在菌株唾液联合乳杆菌05中没有发现抗氧化应激的Pox5基因,在菌株嘉义乳酪杆菌AACE3中没有发现抗氧化应激的trxA基因,且自凝集相关的MapA基因仅存在于菌株唾液联合乳杆菌05中。结果表明,5株乳酸菌具有抵抗胃酸、高温等胁迫,并在宿主肠道发挥抗氧化、抑菌等益生功能的潜力。
表7 5株乳酸菌益生特性相关基因

Table 7 Probiotic property-related genes of five strains of lactic acid bacteria

功能类别
Function
categories
基因
名称
Gene
names
相关基因/系统
Related genes/systems
唾液联合
乳杆菌05
Ligilactobacillus
salivarius 05
嘉义乳酪杆菌
AACE3
Lacticaseibacillus
chiayiensis
AACE3
副干酪乳
酪杆菌XLK401
Lacticaseibacillus
paracasei
XLK401
干酪乳酪杆菌
AACE4
Lacticaseibacillus
casei
AACE4
饲草联合
乳杆菌AACE5
Ligilactobacillus
pabuli
AACE5


抗逆性
Stress resistance
dltA 磷壁酸生物合成/修饰系统 + + + + +
clpX ATP依赖型Clp蛋白酶系统 + + + + +
dnaJ 热休克蛋白家族 + + + + +
dnaK 热休克蛋白家族 + + + + +
grpE 热休克蛋白家族 + + + + +
hslO 热休克蛋白家族 + + + + +


DNA和蛋白质保护及修复
Protection and repair of
DNA and proteins
clpC ATP依赖型Clp蛋白酶系统 + + + + +
msrB 硫氨酸亚砜还原酶系统 + + + + +


抗氧化应激反应
Antioxidative stress response
Tpx 硫氧还蛋白系统/过氧化物酶 + + + + +
trxA 硫氧还蛋白系统 + - + + +
Pox5 丙酮酸氧化酶系统 - + + + +


黏附能力
Adhesion ability
fbp 纤连蛋白结合蛋白 + + + + +
luxS S-核糖基高半胱氨酸裂
解酶/群体感应系统
+ + + + +
tuf 延伸因子 + + + + +
自聚集能力
Autoaggregation ability
MapA 黏液结合蛋白/表面蛋白 + - - - -

“+”表示检测到该基因,“-”表示未检测到该基因。

“+” indicated the gene was detected, and “-” indicated the gene was not detected.

3 讨论

本研究综合利用体外益生特性和安全性评价及全基因组分析,对5株乳酸菌的潜在益生能力、安全性及遗传基础进行了系统评估。结果表明,5株乳酸菌在抑菌性能、耐受性、表面特性及安全性方面均表现出良好的益生潜力,且不同菌株对特定致病菌的抑制效果及对人工模拟肠胃液和胆盐的耐受能力存在差异,其全基因组信息进一步从分子水平上揭示了潜在的益生机制和遗传多样性,为将其开发为饲用替抗益生菌制剂提供了理论基础。
体外抑菌试验显示,5株乳酸菌对弗氏志贺氏菌BDS8、大肠杆菌CMCC(B)44102、肠道沙门氏菌CMCC(B)50094和金黄色葡萄球菌ATCC 6538等多种常见畜禽致病菌均具有良好的抑制作用,其中干酪乳酪杆菌AACE4对弗氏志贺氏菌BDS8、副干酪乳酪杆菌XLK401对金黄色葡萄球菌ATCC 6538和大肠杆菌CMCC(B)44102的抑制效果在5株菌中较好。翟波[37]研究发现,副干酪乳酪杆菌ZB-1对金黄色葡萄球菌和大肠杆菌的抑菌圈直径分别为(14.82±0.13) mm和(16.01±0.52) mm。本研究中的副干酪乳酪杆菌XLK401对上述2种致病菌的抑菌圈直径分别为(23.33±0.32) mm和(23.50±0.10) mm,较副干酪乳酪杆菌ZB-1分别提高了57.42%和46.78%,表现出更强的体外抑菌活性。
从耐受性来看,5株乳酸菌在pH为3.0的人工模拟胃液中处理3 h后存活率均高于85%,在pH为4.0条件下存活率达98%以上,0.3%胆盐处理4 h后存活率为60.41%~80.49%;同时,菌株间的耐受能力存在显著差异。王美琦等[38]研究发现,副干酪乳酪杆菌KQNIU在0.3%胆盐环境中处理4 h后存活率为72.43%。相比之下,本研究中的副干酪乳酪杆菌XLK401在相同条件下的存活率高达80.49%,较副干酪乳酪杆菌KQNIU提高了8.06个百分点,表现出更优的胆盐耐受能力,预示其在进入宿主肠道后具有更强的定植潜力。胃酸耐受性是益生菌活着到达肠道并发挥功能的先决条件。张磊等[39]研究显示,鸡源唾液联合乳杆菌WLS001、WLS002、WLS003和WLS004在pH为2.0条件下处理4 h的存活率分别为30.77%、25.20%、19.79%和29.75%。相比之下,本研究中的5株乳酸菌在同等强酸条件下均表现出更优的耐受性,存活率均超过50%。其中,干酪乳酪杆菌AACE4存活率高达86.80%,较唾液联合乳杆菌WLS001、WLS002、WLS003和WLS004分别提高56.03、61.60、67.01和57.05个百分点;即便是耐受性相对较低的饲草联合乳杆菌AACE5和唾液联合乳杆菌05,其存活率也分别达到50.21%和50.25%,明显高于唾液联合乳杆菌WLS001、WLS002、WLS003和WLS004。这表明本研究的菌株具有更强的抗胃酸胁迫能力,为后续在畜禽消化道内的定植和益生功能的发挥奠定了基础。
菌株在宿主体内实现定植并发挥功效,需具备良好的耐酸和肠胃耐受能力[40]。本研究显示,5株乳酸菌在模拟胃液(pH≥3)和肠液中均能保持较高存活率。同时,在其基因组中注释到与耐酸(dltAclpX)、热休克应激(dnaKgrpE)相关的功能基因,这些基因共同构成了菌株应对环境胁迫的分子基础,保障了菌株在消化道中的存活[41-42]。此外,所有菌株均编码与黏附定植相关的基因,如fbpluxStuf[43-44];而唾液联合乳杆菌05特有的MapA基因可能与其较高的自聚集能力直接相关[45-46],有助于该菌在肠道上皮的初期定植。
基于系统发育树和泛基因组分析表明,副干酪乳酪杆菌XLK401与干酪乳酪杆菌AACE4亲缘关系较近,具有高度相似的基因组特征,该结果与杨兰等[47]的研究结果一致。而唾液联合乳杆菌05、嘉义乳酪杆菌AACE3和饲草联合乳杆菌AACE5在基因组大小、GC含量及泛基因组组成上存在差异,揭示了乳酸菌丰富的遗传多样性[48]。CAZy分析进一步发现,饲草联合乳杆菌AACE5编码的GH数量远超其他菌株,表明其具备更强的碳水化合物代谢潜能[49],这可能赋予其在复杂饲料原料环境中独特的代谢竞争优势。
生物安全性是益生菌应用于畜牧养殖的前提[50]。本研究中5株乳酸菌均无溶血性,符合益生菌的基本安全标准,且全基因组序列中均未检测到毒力相关基因,初步排除了菌株的致病性风险,符合饲用益生菌的筛选要求。药敏试验结果显示,5株乳酸菌对青霉素、氨苄西林及氯霉素等临床重要抗生素普遍表现为敏感或中度敏感;其中,仅嘉义乳酪杆菌AACE3对四环素表现出表型耐药,该表型与其基因组中携带的四环素耐药基因的结果相一致;唾液联合乳杆菌05、嘉义乳酪杆菌AACE3、副干酪乳酪杆菌XLK401和干酪乳酪杆菌AACE4所携带的耐药基因均定位于菌株染色体骨架核心区,且侧翼序列中未发现转座酶、整合酶及质粒复制子蛋白等可移动遗传元件。这一特征证实,上述耐药基因属于物种固有的染色体遗传组成,而非获得性外源基因,极大地降低了其向肠道致病菌发生水平基因转移(horizontal gene transfer,HGT)的风险。同时,干酪乳酪杆菌AACE4虽携带氨基糖苷类抗生素耐药基因,但其药敏试验表型敏感,进一步证明了其抗性属于乳酸杆菌天然低渗透性导致的固有低表达特征[51]。此外,值得注意的是,虽然在唾液联合乳杆菌05中未检测到万古霉素类抗生素耐药基因,但在其他乳酸菌物种中万古霉素固有耐药现象较为常见[52-53],其潜在的HGT风险仍需在后续研究中予以关注。综上可知,5株乳酸菌携带的耐药基因数量有限,且不含毒力基因,符合饲用微生物制剂安全性的基本要求,未来仍需通过动物试验进一步验证其在体内的益生功效及替抗效果。

4 结论

综上所述,本试验研究的5株乳酸菌在表型和基因层面均展现出良好的益生潜力和安全性,初步具备了候选益生菌的特征,可为后续研发新型替抗益生菌制剂提供优良的菌株资源和理论依据。
[1]
ZHANG F, CHEN Z T, SHI J Y, et al. Challenges and constraints to the sustainability of poultry farming in China[J]. Animal Bioscience, 2025, 38(4):789-801.

[2]
陈红英, 王月颖, 傅思武. 抗生素在养殖业中的应用现状[J]. 现代畜牧科技, 2019(5):1-3.

CHEN H Y, WANG Y Y, FU S W. Application status of antibiotics in aquaculture[J]. Modern Animal Husbandry Science & Technology, 2019(5):1-3. (in Chinese)

[3]
FISHBEIN S R S, MAHMUD B, DANTAS G. Antibiotic perturbations to the gut microbiome[J]. Nature Reviews Microbiology, 2023, 21(12):772-788.

[4]
YAMAGUCHI T, KONISHI H, AOKI K, et al. The gut microbiome diversity of Clostridioides difficile-inoculated mice treated with vancomycin and fidaxomicin[J]. Journal of Infection and Chemotherapy, 2020, 26(5):483-491.

[5]
FREDERIKSEN R F, URDAHL A M, SLETTEMEÅS J S, et al. Genomic characterization of vancomycin-resistant Enterococci in Norwegian poultry[J]. PLoS One, 2025, 20(6):e0324789.

[6]
陈婷, 崔亚东, 兰伟, 等. 氨基葡萄糖的功能及其在动物生产中的应用[J]. 畜牧兽医学报, 2025, 56(4):1518-1526.

CHEN T, CUI Y D, LAN W, et al. Function of glucosamine and its application in animal production[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(4):1518-1526. (in Chinese)

[7]
SI W, ZHAO X, LI R T, et al. Lactobacillus rhamnosus GG induces STING-dependent IL-10 in intestinal monocytes and alleviates inflammatory colitis in mice[J]. The Journal of Clinical Investigation, 2025, 135(3):e174910.

[8]
郝晓娜, 罗天淇, 张健, 等. 植物乳杆菌YW11杀菌型发酵乳调节肠道菌群结构[J]. 食品科学, 2019, 40(15):169-176.

HAO X N, LUO T Q, ZHANG J, et al. Regulation of intestinal flora structure by pasteurized fermented milk with Lactobacillus plantarum YW11[J]. Food Science, 2019, 40(15):169-176. (in Chinese)

[9]
龚胜, 邓树勇, 甘凌秀. 不同水平的植物乳杆菌代谢产物对肉鸡生长性能、粪微生物菌群及绒毛形态的影响[J]. 中国饲料, 2019(4):36-40.

GONG S, DENG S Y, GAN L X. Effects of different levels Lactobacillus plantarum metabolite on growth performance,fecal microflora and intestinal villus morphology[J]. China Feed, 2019(4):36-40. (in Chinese)

[10]
荣静, 彭啸峰, 李耿辉, 等. 禽源乳杆菌联合酵母发酵豆粕对肉鸡生长和肠道健康的影响[J]. 江西农业大学学报, 2025, 47(2):465-477.

RONG J, PENG X F, LI G H, et al. Effects of soybean meal fermented by endogenous lactic acid bacteria in birds and yeast on growth performance,immune organ index and intestinal health of broilers[J]. Acta Agriculturae Universitatis Jiangxiensis, 2025, 47(2):465-477. (in Chinese)

[11]
HUANG C H, LIOU J S, LEE A Y, et al. Polyphasic characterization of a novel species in the Lactobacillus casei group from cow manure of Taiwan:description of L. chiayiensis sp. nov.[J]. Systematic and Applied Microbiology, 2018, 41(4):270-278.

[12]
BERNARDEAU M, VERNOUX J P, HENRI-DUBERNET S, et al. Safety assessment of dairy microorganisms:the Lactobacillus genus[J]. International Journal of Food Microbiology, 2008, 126(3):278-285.

[13]
KIM E, YANG S M, KIM D, et al. Complete genome sequencing and comparative genomics of three potential probiotic strains,Lacticaseibacillus casei FBL6,Lacticaseibacillus chiayiensis FBL7,and Lacticaseibacillus zeae FBL8[J]. Frontiers in Microbiology, 2022, 12:794315.

[14]
LI X D, LU Y, LUO C Y, et al. Lacticaseibacillus chiayiensis mediate intestinal microbiome and microbiota-derived metabolites regulating the growth and immunity of chicks[J]. Veterinary Microbiology, 2024, 290:109969.

[15]
CARTER A, ADAMS M, LA RAGIONE R M, et al. Colonisation of poultry by Salmonella Enteritidis S1400 is reduced by combined administration of Lactobacillus salivarius 59 and Enterococcus faecium PXN-33[J]. Veterinary Microbiology, 2017, 199:100-107.

[16]
田丰伟, 杨震南, 丁历伟, 等. 副干酪乳杆菌LC01对人体肠道菌群的调节作用[J]. 中国食品学报, 2018, 18(10):24-30.

TIAN F W, YANG Z N, DING L W, et al. Regulation function of Lactobacillus paracasei LC01 on human body’s intestinal microbiota[J]. Journal of Chinese Institute of Food Science and Technology, 2018, 18(10):24-30. (in Chinese)

[17]
李良, 尚可, 彭玲玲, 等. 益生菌粉(副干酪乳酪杆菌207-27)的毒理学安全性评价[J]. 中国微生态学杂志, 2023, 35(12):1398-1406.

LI L, SHANG K, PENG L L, et al. Toxicological safety of probiotic powder (Lacticaseibacillus paracasei 207-27)[J]. Chinese Journal of Microecology, 2023, 35(12):1398-1406. (in Chinese)

[18]
李昊, 刘慧, 张红星, 等. 副干酪乳杆菌KL1制剂对蛋鸡生产性能、蛋品质及鸡蛋中胆固醇含量的影响研究[J]. 畜牧兽医学报, 2021, 52(8):2213-2222.

LI H, LIU H, ZHANG H X, et al. Effects of Lactobacillus paracasei KL1 preparation on production performance,egg quality and cholesterol content in eggs of laying hens[J]. Acta Veterinaria et Zootechnica Sinica, 2021, 52(8):2213-2222. (in Chinese)

[19]
赵秀英, 县怡涵, 李晨博, 等. 灌喂植物乳杆菌和干酪乳杆菌增加仔猪肠道菌群多样性及短链脂肪酸生成[J]. 微生物学报, 2016, 56(8):1291-1300.

ZHAO X Y, XIAN Y H, LI C B, et al. Feeding Lactobacillus plantarum and Lactobacillus casei increased microbial diversity and short chain fatty acids production in the gut-intestinal tract of weaning piglets[J]. Acta Microbiologica Sinica, 2016, 56(8):1291-1300. (in Chinese)

[20]
尹珺伊, 刘秋瑾, 田秋丰, 等. 一株干酪乳杆菌的分离鉴定及生物学特性研究[J]. 中国畜牧兽医, 2021, 48(2):516-524.

YIN J Y, LIU Q J, TIAN Q F, et al. Isolation,identification and biological characteristics of a strain of Lactobacillus casei[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(2):516-524. (in Chinese)

[21]
龙小文. 日粮中添加干酪乳杆菌对蛋鸡生产性能、血清生化指标及肠道菌群的影响[J]. 饲料研究, 2023, 46(1):60-65.

LONG X W. Effect of Lactobacillus casei supplementation in diets on production performance,serum biochemical indexes and intestinal flora of laying hens[J]. Feed Research, 2023, 46(1):60-65. (in Chinese)

[22]
ELAZAB S T, ELSHATER N S, KISHAWAY A T Y, et al. Cinnamon extract and probiotic supplementation alleviate copper-induced nephrotoxicity via modulating oxidative stress,inflammation,and apoptosis in broiler chickens[J]. Animals, 2021, 11(6):1609.

[23]
李海龙, 丁小玲, 李吕木. 唾液乳杆菌的研究进展[J]. 微生物学杂志, 2015, 35(5):94-97.

LI H L, DING X L, LI L M. Advances in saliva lactobacillus (Lactobacillus salivarius)[J]. Journal of Microbiology, 2015, 35(5):94-97. (in Chinese)

[24]
SHOJADOOST B, KULKARNI R R, BRISBIN J T, et al. Interactions between Lactobacilli and chicken macrophages induce antiviral responses against avian influenza virus[J]. Research in Veterinary Science, 2019, 125:441-450.

[25]
李珏, 王银环, 郑小玲, 等. 市售益生菌产品中15株乳杆菌的精准鉴定及毒力基因和耐药基因研究[J]. 中国现代应用药学, 2024, 41(19):2686-2693.

LI J, WANG Y H, ZHENG X L, et al. Accurate identification of 15 strains of Lactobacillus in commercially available probiotics and study on virulence genes and drug resistance genes[J]. Chinese Journal of Modern Applied Pharmacy, 2024, 41(19):2686-2693. (in Chinese)

[26]
ALTAVAS P J D R, AMORANTO M B C, KIM S H, et al. Safety assessment of five candidate probiotic Lactobacilli using comparative genome analysis[J]. Access Microbiology, 2024, 6(1):000715.v4.

[27]
林晓颖, 张素平, 徐明超, 等. 弯曲广布乳杆菌HFS9基因组分析及益生特性[J]. 微生物学通报, 2023, 50(3):1023-1039.

LIN X Y, ZHANG S P, XU M C, et al. Genomic characteristics and probiotic properties of Latilactobacillus curvatus HFS9[J]. Microbiology China, 2023, 50(3):1023-1039. (in Chinese)

[28]
丁瑞培, 刘承忠, 史灿灿, 等. 动物双歧杆菌B4株的全基因组测序及其益生特性分析[J]. 安徽医科大学学报, 2025, 60(2):255-265.

DING R P, LIU C Z, SHI C C, et al. Whole genome sequencing of Bifidobacterium animalis subsp. lactic B4 and analysis of its probiotic properties[J]. Acta Universitatis Medicinalis Anhui, 2025, 60(2):255-265. (in Chinese)

[29]
王宵, 胡云龙, 徐伟慧, 等. 植物乳植杆菌WX-1的全基因组测序及益生菌评价[J]. 食品与发酵工业, 2025, 51(23):104-114.

WANG X, HU Y L, XU W H, et al. Whole genome sequencing and beneficial evaluation of Lactiplantibacillus plantarum WX-1[J]. Food and Fermentation Industries, 2025, 51(23):104-114. (in Chinese)

[30]
江宇航.唾液乳杆菌L. S. 05的益生潜力及其细菌素的抑菌作用[D]. 硕士学位论文. 昆明: 昆明理工大学, 2022.

JIANG Y H.The probiotic potential of Lactobacillus salivarius L.S.05 and its bacteriocin antibacterial effect[D].Master’s Thesis. Kunming: Kunming University of Science and Technology, 2022. (in Chinese)

[31]
林连兵, 江宇航, 杨瑞思, 等. 一种唾液乳杆菌发酵液在作为饲料防霉剂中的应用:CN202011523897.8[P].2020-12-22.

LIN L B, JIANG Y H, YANG R S, et al. Application of a fermentation broth of Lactobacillus salivarius as a feed mold inhibitor:CN202011523897.8[P].2020-12-22. (in Chinese).

[32]
何秀. 益生菌的筛选及对中药发酵效果和应用的研究[D]. 硕士学位论文. 昆明: 昆明理工大学, 2022.

HE X. Screening of probiotics and research on fermentation effect and application of traditional Chinese medicine[D]. Master’s Thesis. Kunming: Kunming University of Science and Technology, 2022. (in Chinese)

[33]
WICK R R, JUDD L M, GORRIE C L, et al. Unicycler:resolving bacterial genome assemblies from short and long sequencing reads[J]. PLoS Computational Biology, 2017, 13(6):e1005595.

[34]
SEEMANN T. Prokka:rapid prokaryotic genome annotation[J]. Bioinformatics, 2014, 30(14):2068-2069.

[35]
VAN HEEL A J, DE JONG A, SONG C X, et al. BAGEL4:a user-friendly web server to thoroughly mine RiPPs and bacteriocins[J]. Nucleic Acids Research, 2018, 46(W1):W278-W281.

[36]
BLIN K, SHAW S, STEINKE K, et al. antiSMASH 5.0:updates to the secondary metabolite genome mining pipeline[J]. Nucleic Acids Research, 2019, 47(W1):W81-W87.

[37]
翟波. 副干酪乳酪杆菌ZB-1的益生特性及其发酵饲料研究[D]. 硕士学位论文. 无锡: 江南大学, 2025.

ZHAI B.Study on the probiotic properties of Lactobacillus paracasei ZB-1 and its fermented[D].Master’s Thesis. Wuxi: Jiangnan University, 2025. (in Chinese)

[38]
王美琦, 姜联广, 吴琼, 等. 一株肉用犊牛源乳酸菌分离鉴定、益生潜能及全基因组分析[J/OL]. 微生物学通报, 2026:1- 17(2026-02-09)[2026-02-22].https://doi.org/10.13344/j.microbiol.china.251113.

WANG M Q, JIANG L G, WU Q, et al.Isolation,identification,probiotic potential and whole-genome analysis of a lactic acid bacterium from beef calves[J/OL]. Microbiology China, 2026:1- 17(2026-02-09)[2026-02-22].https://doi.org/10.13344/j.microbiol.china.251113. (in Chinese)

[39]
张磊, 宫晓炜, 郑福英, 等. 鸡源唾液乳杆菌的分离鉴定及生物学特性分析[J]. 中国兽医科学, 2021, 51(7):865-874.

ZHANG L, GONG X W, ZHENG F Y, et al. Isolation,identification and biological characteristics analysis of Lactobacillus salivarius from chicken[J]. Chinese Veterinary Science, 2021, 51(7):865-874. (in Chinese)

[40]
LI X D, LIN Y C, YANG R S, et al. Genomic and in-vitro characteristics of a novel strain Lacticaseibacillus chiayiensis AACE3 isolated from fermented blueberry[J]. Frontiers in Microbiology, 2023, 14:1168378.

[41]
FERREIRA A B, DE OLIVEIRA M N V, FREITAS F S, et al. Increased expression of clp genes in Lactobacillus delbrueckii UFV H2b20 exposed to acid stress and bile salts[J]. Beneficial Microbes, 2013, 4(4):367-374.

[42]
宁亚维, 孙颖, 张东春, 等. 植物乳杆菌HB13-2抑制白假丝酵母菌作用及机制[J]. 食品科学, 2023, 44(24):164-170.

NING Y W, SUN Y, ZHANG D C, et al. Inhibitory effect and mechanism of Lactiplantibacillus plantarum HB13-2 on Candida albicans[J]. Food Science, 2023, 44(24):164-170. (in Chinese)

[43]
HYMES J P, JOHNSON B R, BARRANGOU R, et al. Functional analysis of an S-layer-associated fibronectin-binding protein in Lactobacillus acidophilus NCFM[J]. Applied and Environmental Microbiology, 2016, 82(9):2676-2685.

[44]
马佳歌, 谭中美, 田子豪, 等. LuxS/AI-2群体感应系统对植物乳杆菌抵御环境胁迫的作用[J]. 食品科学技术学报, 2024, 42(1):106-113.

MA J G, TAN Z M, TIAN Z H, et al. Effect of LuxS/AI-2 quorum sensing system on resistance of Lactobacillus plantarum to environmental stress[J]. Journal of Food Science and Technology, 2024, 42(1):106-113. (in Chinese)

[45]
刘蕾, 厍晓, 钱杨, 等. tuf基因同源超表达对植物乳杆菌LR-1生理行为的影响[J]. 食品科学, 2019, 40(8):48-55.

LIU L, SHE X, QIAN Y, et al. Effect of tuf homogenous overexpression on physiological behaviors of Lactobacillus plantarum LR-1[J]. Food Science, 2019, 40(8):48-55. (in Chinese)

[46]
MATSUO Y, MIYOSHI Y, OKADA S, et al. Receptor-like molecules on human intestinal epithelial cells interact with an adhesion factor from Lactobacillus reuteri[J]. Bioscience of Microbiota,Food and Health, 2012, 31(4):93-102.

[47]
杨兰, 杨洋, 李伟勋, 等. 干酪乳杆菌CRISPR基因座分析[J]. 中国农业科学, 2019, 52(3):521-529.

YANG L, YANG Y, LI W X, et al. CRISPR locus analysis of Lactobacillus casei[J]. Scientia Agricultura Sinica, 2019, 52(3):521-529. (in Chinese)

[48]
KANT R, BLOM J, PALVA A, et al. Comparative genomics of Lactobacillus[J]. Microbial Biotechnology, 2011, 4(3):323-332.

[49]
彭明芳, 李培骏, 单杨, 等. 比较基因组揭示广西酸菜乳杆菌碳水化合物活性酶谱[J]. 食品与发酵工业, 2021, 47(4):68-73.

PENG M F, LI P J, SHAN Y, et al. Comparative genome analysis of carbohydrate activity enzymes zymogram of Lactobacillus from Guangxi pickle[J]. Food and Fermentation Industries, 2021, 47(4):68-73. (in Chinese)

[50]
NAEEM M, BOURASSA D. Probiotics in poultry:unlocking productivity through microbiome modulation and gut health[J]. Microorganisms, 2025, 13(2):257.

[51]
DEC M, HERMAN-OSTRZYŻEK K, ZOMER A, et al. Susceptibility of Lactobacillaceae strains to aminoglycoside antibiotics in the light of EFSA guidelines[J]. Life, 2025, 15(5):732.

[52]
ANISIMOVA E, GOROKHOVA I, KARIMULLINA G, et al. Alarming antibiotic resistance of Lactobacilli isolated from probiotic preparations and dietary supplements[J]. Antibiotics, 2022, 11(11):1557.

[53]
SELIM S. Mechanisms of Gram-positive vancomycin resistance (review)[J]. Biomedical Reports, 2022, 16(1):7.

文章导航

/