研究论文

虉草与精料补充料比例对发酵全混合日粮发酵品质、微生物群落和代谢物的影响

  • 陈豪 , 1 ,
  • 黄元芳 1, * ,
  • 王之盛 1 ,
  • 薛白 1 ,
  • 王立志 1 ,
  • 张翔飞 2 ,
  • 尚恺圆 2 ,
  • 文兴金 2 ,
  • 游明鸿 2 ,
  • 邹华围 , 1, ** ,
  • 彭全辉 , 1, **
展开
  • 1 四川农业大学动物营养研究所, 农业农村部动物抗病营养与饲料重点实验室, 成都 611130
  • 2 四川省草原科学研究院, 成都 611731
**邹华围,讲师,硕士生导师,E-mail: ;
彭全辉,副教授,硕士生导师,E-mail:

*同等贡献作者

陈 豪(1999—),男,贵州铜仁人,硕士研究生,动物营养与饲料科学专业。E-mail:

Office editor: 靳 爽

收稿日期: 2025-11-27

  网络出版日期: 2026-08-13

基金资助

天府森林粮库-草木业关键技术研究与应用项目(CXTD2025006)

四川省科技教育联合基金项目(2025NSFSC2127)

四川省科技计划项目(2025NZZJ0003)

Effects of Ratios of Reed Canary Grass (Phalaris arundinacea L.) to Concentrate Supplement on Fermentation Quality, Microbial Community and Metabolites of Fermented Total Mixed Ration

  • CHEN Hao , 1 ,
  • HUANG Yuanfang 1 ,
  • WANG Zhisheng 1 ,
  • XUE Bai 1 ,
  • WANG Lizhi 1 ,
  • ZHANG Xiangfei 2 ,
  • SHANG Kaiyuan 2 ,
  • WEN Xingjin 2 ,
  • YOU Minghong 2 ,
  • ZOU Huawei , 1, ** ,
  • PENG Quanhui , 1, **
Expand
  • 1 Key Laboratory of Animal Disease Resistant Nutrition and Feed, Ministry of Agriculture and Rural Affairs, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Sichuan Academy of Grassland Sciences, Chengdu 611731, China
**ZOU Huawei, lecturer, E-mail: ;
PENG Quanhui, associate professor, E-mail:

*Contributed equally

Received date: 2025-11-27

  Online published: 2026-08-13

摘要

本试验旨在探究虉草与精料补充料比例对发酵全混合日粮(FTMR)发酵品质、微生物群落和代谢物的影响。以干物质(DM)为基础,将虉草与精料补充料分别以100∶0(T1组)、60∶40(T2组)、50∶50(T3组)、40∶60(T4组)的比例混合并裹包处理,每组制备20个裹包,每包70 kg,置于阴凉干燥环境中发酵60 d。结果表明:1)随着精料补充料比例的增加,原料及FTMR的DM、水溶性碳水化合物、粗蛋白质、粗灰分、钙和磷含量呈线性升高(P<0.05),中性洗涤纤维和酸性洗涤纤维含量呈线性降低(P<0.05)。2)FTMR的pH、氨态氮/总氮(NH3-N/TN)及乳酸和丙酸含量随精料补充料比例的增加呈二次曲线变化(P<0.05);T3组pH显著低于T1、T2和T4组(P<0.05),乳酸含量显著高于T1、T2和T4组(P<0.05),NH3-N/TN显著低于T1和T2组(P<0.05)。3)β多样性分析结果表明,T2、T3和T4组与T1组的微生物群落结构存在差异。在门水平上,厚壁菌门(Firmicutes)为4组中的优势菌门,且在T3组中相对丰度最高;在属水平上,乳杆菌属(Lactobacillus)、魏斯氏菌属(Weissella)和明串珠菌属(Leuconostoc)为各组中的优势菌属;在种水平上,T3组弯曲乳杆菌(Lactobacillus curvatus)相对丰度显著高于T1、T2和T4组(P<0.05),西巴利亚魏斯氏菌(Weissella cibaria)相对丰度显著高于T1组(P<0.05)。4)代谢组学分析结果表明,与T1组相比,T3组上调的代谢物包括水杨酸、花生四烯酸、4-羟基苯甲酸等,下调的代谢物包括甘露醇、N-甲基酪胺、酪氨酸等。综上所述,虉草与精料补充料比例为50∶50时,FTMR中有益微生物相对丰度更高,有益代谢物含量得到有效提升,且其pH最低,乳酸含量最高,NH3-N/TN最低,发酵品质最优。

本文引用格式

陈豪 , 黄元芳 , 王之盛 , 薛白 , 王立志 , 张翔飞 , 尚恺圆 , 文兴金 , 游明鸿 , 邹华围 , 彭全辉 . 虉草与精料补充料比例对发酵全混合日粮发酵品质、微生物群落和代谢物的影响[J]. 动物营养学报, 2026 , 38(8) : 6289 -6303 . DOI: 10.12418/CJAN2026.502

Abstract

This experiment was conducted to investigate the effects of ratios of reed canary grass (Phalaris arundinacea L.) to concentrate supplement on fermentation quality, microbial community and metabolites of fermented total mixed ration (FTMR). Based on dry matter (DM), reed canary grass and concentrate supplement were mixed and baled at ratios of 100∶0 (T1 group), 60∶40 (T2 group), 50∶50 (T3 group) and 40∶60 (T4 group), respectively. Twenty bales were prepared for each group, with each bale weighing 70 kg, and all bales were fermented in a cool and dry environment for 60 days. The results showed as follows: 1) with the increase of the proportion of concentrate supplement, the contents of DM, water-soluble carbohydrates, crude protein, crude ash, calcium and phosphorus in the raw materials and FTMR increased linearly (P<0.05), while the contents of neutral detergent fiber and acid detergent fiber decreased linearly (P<0.05). 2) The pH, ammonia nitrogen/total nitrogen (NH3-N/TN), as well as lactic acid and propionic acid contents of FTMR showed a quadratic curvilinear change with the increase of concentrate supplement ratio (P<0.05); T3 group had significantly lower pH (P<0.05), significantly higher lactic acid content (P<0.05) than T1, T2 and T4 groups, and significantly lower NH3-N/TN (P<0.05) than T1 and T2 groups. 3) The results of β-diversity analysis indicated that there were differences in microbial community structure between T2, T3, T4 groups and T1 group. At phylum level, Firmicutes was the dominant phylum in all four groups, with the highest relative abundance in T3 group; at genus level, Lactobacillus, Weissella and Leuconostoc were the dominant genera in all groups; at species level, the relative abundance of Lactobacillus curvatus in T3 group was significantly higher than that in T1, T2 and T4 groups (P<0.05), and the relative abundance of Weissella cibaria was significantly higher than that in T1 group (P<0.05). 4) Metabolomic analysis results showed that compared with T1 group, the up-regulated metabolites in T3 group included salicylic acid, arachidonic acid and 4-hydroxybenzoic acid, while the down-regulated metabolites included mannitol, N-methyltyramine and tyrosine. In conclusion, when the mixing ratio of reed canary grass to concentrate supplement is 50∶50, FTMR has higher relative abundance of beneficial microorganisms and effectively increased content of beneficial metabolites, along with the lowest pH, the highest lactic acid content and the lowest NH3-N/TN, presenting the optimal fermentation quality.

青藏高原是我国重要的高寒草地畜牧业生产区,然而该地区因海拔高、生态环境恶劣,冬季牦牛等草食动物常面临饲料短缺问题,导致体重和产奶量下降,极端情况下甚至出现大规模死亡[1]。因此,如何将暖季产量较高的牧草长期储存并充分保留其营养价值,成为该地区亟待解决的重要产业问题。虉草(Phalaris arundinacea L.)是禾本科冷季型牧草,兼具耐寒、高产特性,能够在青藏高原良好生长,当地牧民也将其作为牛、羊的饲草来源[2-3]。制作干草或青贮是保存牧草的常用方法,但在青藏高原等高寒地区调制干草较难实现,因此青贮饲料是这些地区反刍动物更为常见的饲料来源[4]
发酵全混合日粮(fermented total mixed ration,FTMR)是在青贮饲料基础上发展而来的,即将成品全混合日粮(TMR)用专业打包机和专用塑料拉伸膜紧密包裹,进行厌氧发酵[5-6]。相比于青贮饲料,FTMR所含营养物质更加全面,可直接满足反刍动物的营养需求,且便于牧民饲喂牲畜。但青贮技术在高寒地区的应用仍存在挑战,乳酸菌等青贮有益菌在低温环境中数量稀少,导致牧草单一青贮的发酵效果较差[7-8]。水溶性碳水化合物(WSC)是青贮微生物的主要发酵底物,补充底物可促进有益菌增殖、抑制有害菌生长,有效提升青贮品质。Wang等[9]研究发现,外源添加果糖后青贮发酵体系中明串珠菌相对丰度显著高于对照组,片球菌的相对丰度则低于对照组。虉草自身WSC含量较低,单独青贮效果差,而精料补充料富含WSC,可有效补充发酵底物。目前,关于将虉草制作成FTMR的可行性,以及虉草与精料补充料以何种比例混合才能获得最佳发酵品质,尚未见相关报道。因此,本试验旨在研究虉草与精料补充料比例对FTMR发酵品质、微生物群落和代谢物的影响,通过宏基因组学和代谢组学手段揭示精料补充料比例改善虉草FTMR品质的机理,为虉草在青藏高原的科学储存与高效利用提供理论依据。

1 材料与方法

1.1 试验材料与设计

本试验于青藏高原东南缘的四川省草地科学研究院试验基地(阿坝州红原县,北纬31°51'~33°33',东经101°51'~103°22',海拔3 500 m)开展。供试虉草为四川省草地科学研究院育成的“川草引3号”;精料补充料由三台县凯亿吉农业综合开发有限责任公司提供,其组成见表1。虉草于7月下旬(抽穗期)收割后,切碎至4~5 cm长度。将虉草与精料补充料在干物质(DM)基础上分别以100∶0(T1组)、60∶40(T2组)、50∶50(T3组)、40∶60(T4组)的比例放入搅拌机中混匀,采用四分法采集青贮前原料样品,随后对原料进行压实、裹包处理(使用4层厚度25 μm的拉伸膜)。每组制作20个裹包,每包70 kg,置于阴凉干燥处发酵60 d(发酵环境温度6.3~18.5 ℃)。发酵结束后,从每组中随机选取6个无损坏裹包,采用四分法取样,用于后续分析。
表1 精料补充料组成(干物质基础)

Table 1 Concentrate supplement composition (DM basis)

项目 Items 含量 Content
玉米 Corn 70.0
小麦麸 Wheat bran 8.0
豆粕 Soybean meal 3.0
棉籽粕 Cottonseed meal 3.5
菜籽粕 Rapeseed meal 9.5
饲料级氯化钠 Feed grade sodium chloride 0.5
大豆油 Soybean oil 1.0
预混料 Premix 4.5
合计 Total 100.0

预混料为每千克精料补充料提供 The premix provided the following per kilogram of the concentrate supplement:VA 5 000 IU,VD3 1 000 IU,VE 25 IU,Cu 10 mg,Fe 60 mg,Zn 80 mg,Mn 30 mg,Se 0.2 mg,I 0.2 mg。

1.2 原料及FTMR营养成分分析

原料及FTMR的DM含量参照GB/T 6435—2014的方法进行测定;粗灰分(Ash)含量参照GB/T 6438—2007的方法进行测定;粗蛋白质(CP)含量参照GB/T 6432—2018,使用Kjeltec-8400全自动凯氏定氮仪(FOSS,丹麦)进行测定;中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量分别参照GB/T 20806—2022和NY/T 1459—2022的方法,使用ANKOM-A2000全自动纤维分析仪(FOSS,丹麦)进行测定;钙(Ca)含量参照GB/T 6436—2018的高锰酸钾法进行测定;磷(P)含量参照GB/T 6437—2018的钼黄比色法进行测定;WSC含量参照Murphy[10]的方法进行测定。

1.3 FTMR发酵品质分析

准确称取90 g FTMR样品,与90 mL蒸馏水充分混合后,经定量滤纸过滤,所得滤液用于pH及氨态氮(NH3-N)、乳酸(LA)、乙酸(AA)、丙酸(PA)、丁酸(BA)含量的测定。滤液pH采用笔式酸度计(pH828,成都浩搏优科技有限公司)进行测定;NH3-N含量参照Huhtanen等[11],采用碱性次氯酸钠-苯酚分光光度法进行测定,并采用凯氏定氮法测定总氮含量;LA、AA、PA和BA等有机酸含量使用气相色谱仪(CP-3800,Varian,美国)进行测定。

1.4 FTMR微生物群落分析

参照Tang等[12]的方法从样品中获取微生物沉淀,随后将样本交由罗宁生物科技有限公司进行测序。具体测定步骤如下:1)采用BIOMICS DNA Microprep Kit(货号Cat-D4301,Zymo Research,美国)对样本基因组DNA(gDNA)进行纯化,使用0.8%琼脂糖电泳及安捷伦2100生物分析仪检测gDNA完整性,采用Tecan F200(PicoGreen染料法)进行核酸浓度检测;2)使用Next Ultra Ⅱ DNA Library Prep Kit for Illumina(货号E7645,NEB,美国)及Next Multiplex Oligos for Illumina(Dual Index Primers Set 1,货号E7600,NEB,美国)构建测序文库,文库构建完成通过安捷伦2100生物分析仪检测文库质量,使用实时荧光定量聚合酶链式反应(qPCR)法检测文库浓度;3)在NovaSeq 6000测序平台进行高通量测序,测序试剂盒为NovaSeq 6000 S4 Reagent Kit (300 Cycles,货号20039236,Illumina,美国),测序模式为PE150;4)对测序所得原始数据进行质量控制与过滤,获得高质量DNA序列,用于后续分析。

1.5 FTMR中代谢物分析

参照Wang等[9]的方法,从FTMR中提取代谢物,将采集的样品交由罗宁生物科技有限公司进行测定。采用液相色谱-质谱联用(LC-MS)技术对FTMR中代谢物进行非靶向代谢组学分析,具体步骤如下:样品解冻后,快速混合均匀;将2 mL样品转移至离心管中;加入400 μL甲醇溶液,并进行混合;于4 ℃、15 000×g下离心10 min,收集上清液转移至2 mL离心管中,浓缩干燥;加入150 μL 80%甲醇水配制的2-氯-L-苯丙氨酸溶液(浓度4 μg/mL)复溶样品,经0.22 μm膜过滤后,将过滤液加入检测瓶,进行LC-MS检测。上机检测色谱条件:流速0.25 mL/min,柱温40 ℃,进样量2 μL;正离子模式下,流动相由0.1%甲酸乙腈和0.1%甲酸水组成;负离子模式下,流动相由乙腈和5 mmol/L甲酸铵水组成。质谱条件:Thermo Q Exactive质谱检测器(Thermo Fisher Scientific,美国),正离子喷雾电压3.50 kV,负离子喷雾电压-2.50 kV,鞘气30 arb,辅助气10 arb,毛细管温度325 ℃。

1.6 数据处理及分析

使用Excel 2016对数据进行初步整理,随后用SPSS 27.0软件对营养成分和发酵品质指标数据进行单因素方差分析(one-way ANOVA),用Tukey法进行组间多重比较,并进行线性和二次多项式正交比较。结果以平均值±标准差表示,P<0.05表示差异显著。
微生物宏基因组学和代谢组学数据使用罗宁生物科技有限公司数据分析平台进行分析。计算微生物群落Chao1、Shannon、Simpson和ACE指数,采用Kruskal-Wallis非参数检验进行组间比较;基于Bray-Curtis距离矩阵,通过主成分分析(PCA)展示微生物样本间的β多样性。基于欧氏距离矩阵,利用PCA降维方法观察代谢物的分布与聚类情况,以|log2[差异倍数(FC)]|≥1、P<0.05、变量重要性投影(VIP)>1为标准筛选差异代谢物。采用Pearson相关性分析评估组间差异微生物与差异代谢物的关联。

2 结果与分析

2.1 虉草与精料补充料比例对原料及FTMR营养成分的影响

表2可知,T2、T3和T4组原料及FTMR的DM、WSC、CP、Ash、Ca和P含量均显著高于T1组(P<0.05),且上述指标含量随精料补充料比例的增加呈线性升高(P<0.05);T2、T3和T4组原料与FTMR的NDF和ADF含量均显著低于T1组(P<0.05),且NDF和ADF含量随精料补充料比例的增加呈线性降低(P<0.05)。
表2 虉草与精料补充料比例对原料及FTMR营养成分的影响

Table 2 Effects of ratios of reed canary grass to concentrate supplement on nutritional composition of raw material and FTMR%

项目
Items
时间
Time/d
组别 Groups PP-value
T1 T2 T3 T4 方差分析
ANOVA
线性
Linear
二次
Quadratic

干物质
DM/% FW
0 36.21±0.01d 39.25±0.06c 46.84±0.03b 52.26±0.03a <0.001 <0.001 0.566
60 33.36±0.04d 34.53±0.01c 42.25±0.02b 49.83±0.11a <0.001 <0.001 0.478

水溶性碳水化合物
WSC/% DM
0 7.16±0.17d 11.74±0.15c 14.74±0.23b 17.55±0.15a <0.001 <0.001 0.257
60 3.77±0.28c 6.63±0.15b 8.11±0.17b 12.71±0.21a <0.001 <0.001 0.334

粗蛋白质
CP/% DM
0 5.78±0.02d 8.18±0.07c 8.54±0.06b 9.34±0.02a <0.001 0.017 0.449
60 5.46±0.08d 8.13±0.08c 8.16±0.17b 9.31±0.02a <0.001 0.025 0.654

中性洗涤纤维
NDF/% DM
0 40.88±0.66a 39.16±0.54b 37.91±0.96b 36.23±1.01c <0.001 0.008 0.258
60 47.89±0.57a 45.90±0.91ab 42.58±0.85b 38.45±0.34c <0.001 0.013 0.362

酸性洗涤纤维
ADF/% DM
0 21.92±0.50a 18.67±0.03b 17.92±0.15b 15.37±0.08c <0.001 0.024 0.332
60 24.42±1.07a 19.89±0.18b 18.88±0.20b 16.58±0.13c <0.001 0.032 0.198

粗灰分
Ash/% DM
0 5.21±0.25b 5.46±0.01a 5.51±0.05a 5.64±0.07a <0.001 0.047 0.047
60 5.49±0.05c 5.65±0.04b 5.99±0.04a 6.01±0.04a <0.001 0.036 0.520


Ca/% DM
0 0.21±0.02c 0.29±0.02b 0.37±0.03a 0.41±0.02a 0.001 0.046 0.564
60 0.26±0.02b 0.28±0.14ab 0.39±0.09ab 0.43±0.04a 0.001 0.043 0.774


P/% DM
0 0.11±0.01d 0.24±0.01c 0.30±0.01b 0.33±0.01a <0.001 0.033 0.344
60 0.13±0.01d 0.24±0.01c 0.31±0.01b 0.35±0.01a <0.001 0.027 0.321

0 d表示发酵前的原料,60 d表示发酵60 d后的FTMR。0 d represents the raw material before fermentation, and 60 d represents the FTMR after 60 days of fermentation.

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。In the same row, values with no letter or the same lowercase letter superscripts mean no significant difference (P>0.05), while with different lowercase letter superscripts mean significant difference (P<0.05). The same as below.

2.2 虉草与精料补充料比例对FTMR发酵品质的影响

表3可知,FTMR的pH、氨态氮/总氮(NH3-N/TN)及LA和PA含量均随精料补充料比例的增加呈二次曲线变化(P<0.05)。其中,T1组pH最高,T3组pH显著低于T1、T2和T4组(P<0.05);T1组LA含量最低,T3组LA含量显著高于T1、T2和T4组(P<0.05);T3组NH3-N/TN显著低于T1和T2组(P<0.05),与T4组无显著差异(P>0.05)。T3组AA含量显著高于T1和T2组(P<0.05);4组中均未检测到BA。
表3 虉草与精料补充料比例对FTMR发酵品质的影响

Table 3 Effects of ratios of reed canary grass to concentrate supplement on fermentation quality of FTMR

项目
Items
组别 Groups PP-value
T1 T2 T3 T4 方差分析
ANOVA
线性
Linear
二次
Quadratic
pH 4.30±0.03a 4.07±0.01b 3.96±0.02c 4.19±0.02ab <0.001 0.221 0.032
乳酸 LA/(mmol/L) 16.59±0.62c 18.67±0.21b 20.75±0.81a 17.05±0.09c 0.009 0.333 0.026
乙酸 AA/(mmol/L) 10.34±0.39b 10.21±0.19b 12.15±0.12a 10.59±0.06ab 0.018 0.544 0.143
丙酸 PA/(mmol/L) 1.35±0.14d 4.14±0.06a 2.45±0.11c 3.53±0.14b <0.001 0.354 0.022
丁酸 BA/(mmol/L) ND ND ND ND
氨态氮/总氮
NH3-N/TN/%
5.39±0.11a 5.33±0.09a 4.21±0.21b 4.71±0.18b 0.021 0.214 0.026

ND表示未检测到。ND means not detected.

2.3 虉草与精料补充料比例对FTMR微生物群落的影响

2.3.1 FTMR微生物群落多样性
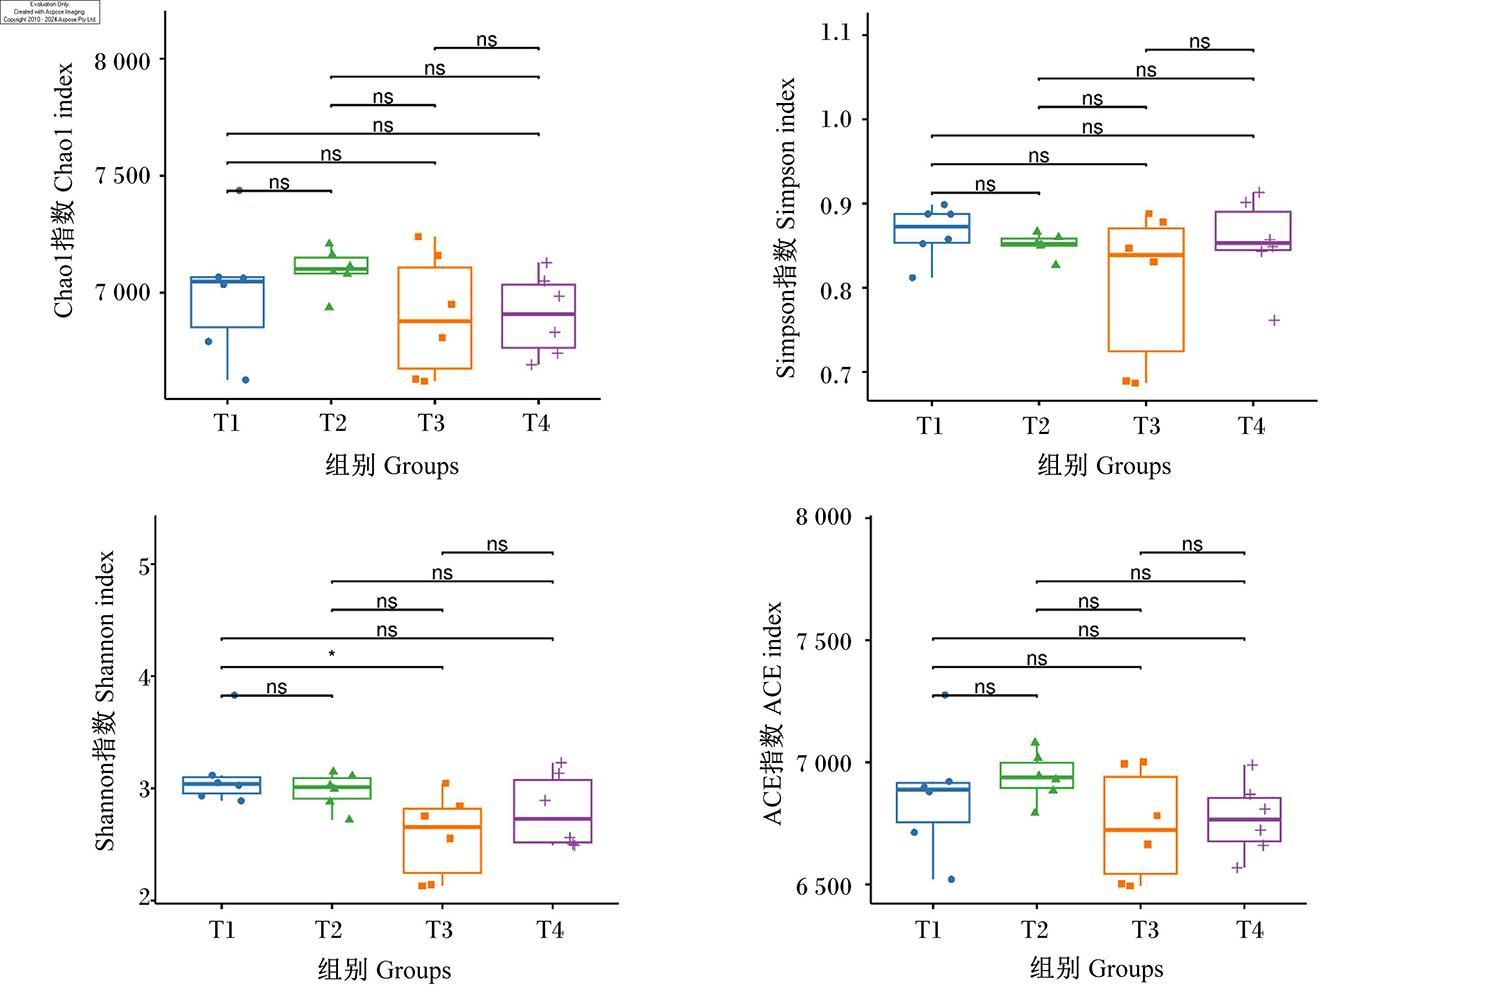
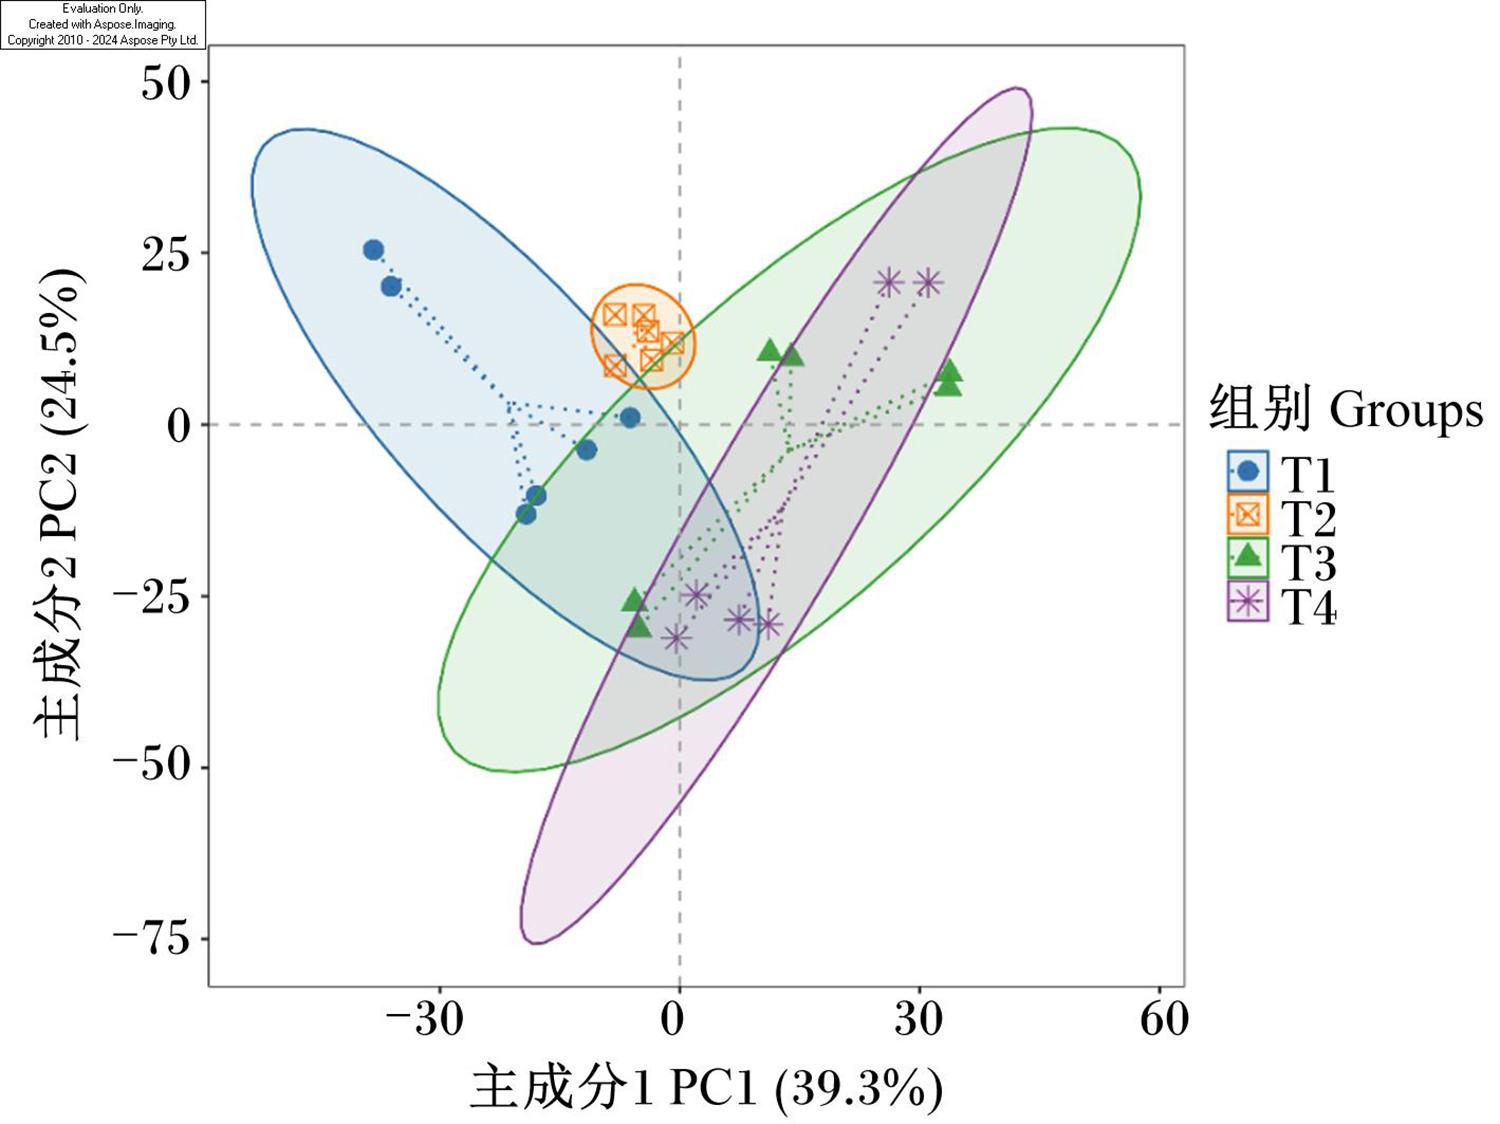
图1所示,T1组Chao1、Simpson和ACE指数与T2、T3、T4组间均无显著差异(P>0.05),而Shannon指数显著高于T3组(P<0.05)。β多样性分析可揭示各组间微生物群落结构差异,PCA结果(图2)显示,主成分1(PC1)的贡献率为39.3%,主成分2(PC2)的贡献率为24.5%。其中,T1组样本主要分布于第2、3象限,与T2、T3、T4组相距较远;而T2、T3、T4组样本相互重叠,与T1组明显区分,表明不同虉草与精料补充料比例改变了FTMR的微生物群落结构。
图1 FTMR微生物群落α多样性分析

ns表示差异不显著(P>0.05),*表示差异显著(P<0.05)。

Fig.1 α diversity analysis of FTMR microbial community

ns represents no significant difference (P>0.05), * represents significant difference (P<0.05).

图2 FTMR微生物群落主成分分析

Fig.2 PCA of FTMR microbial community

2.3.2 FTMR微生物群落组成

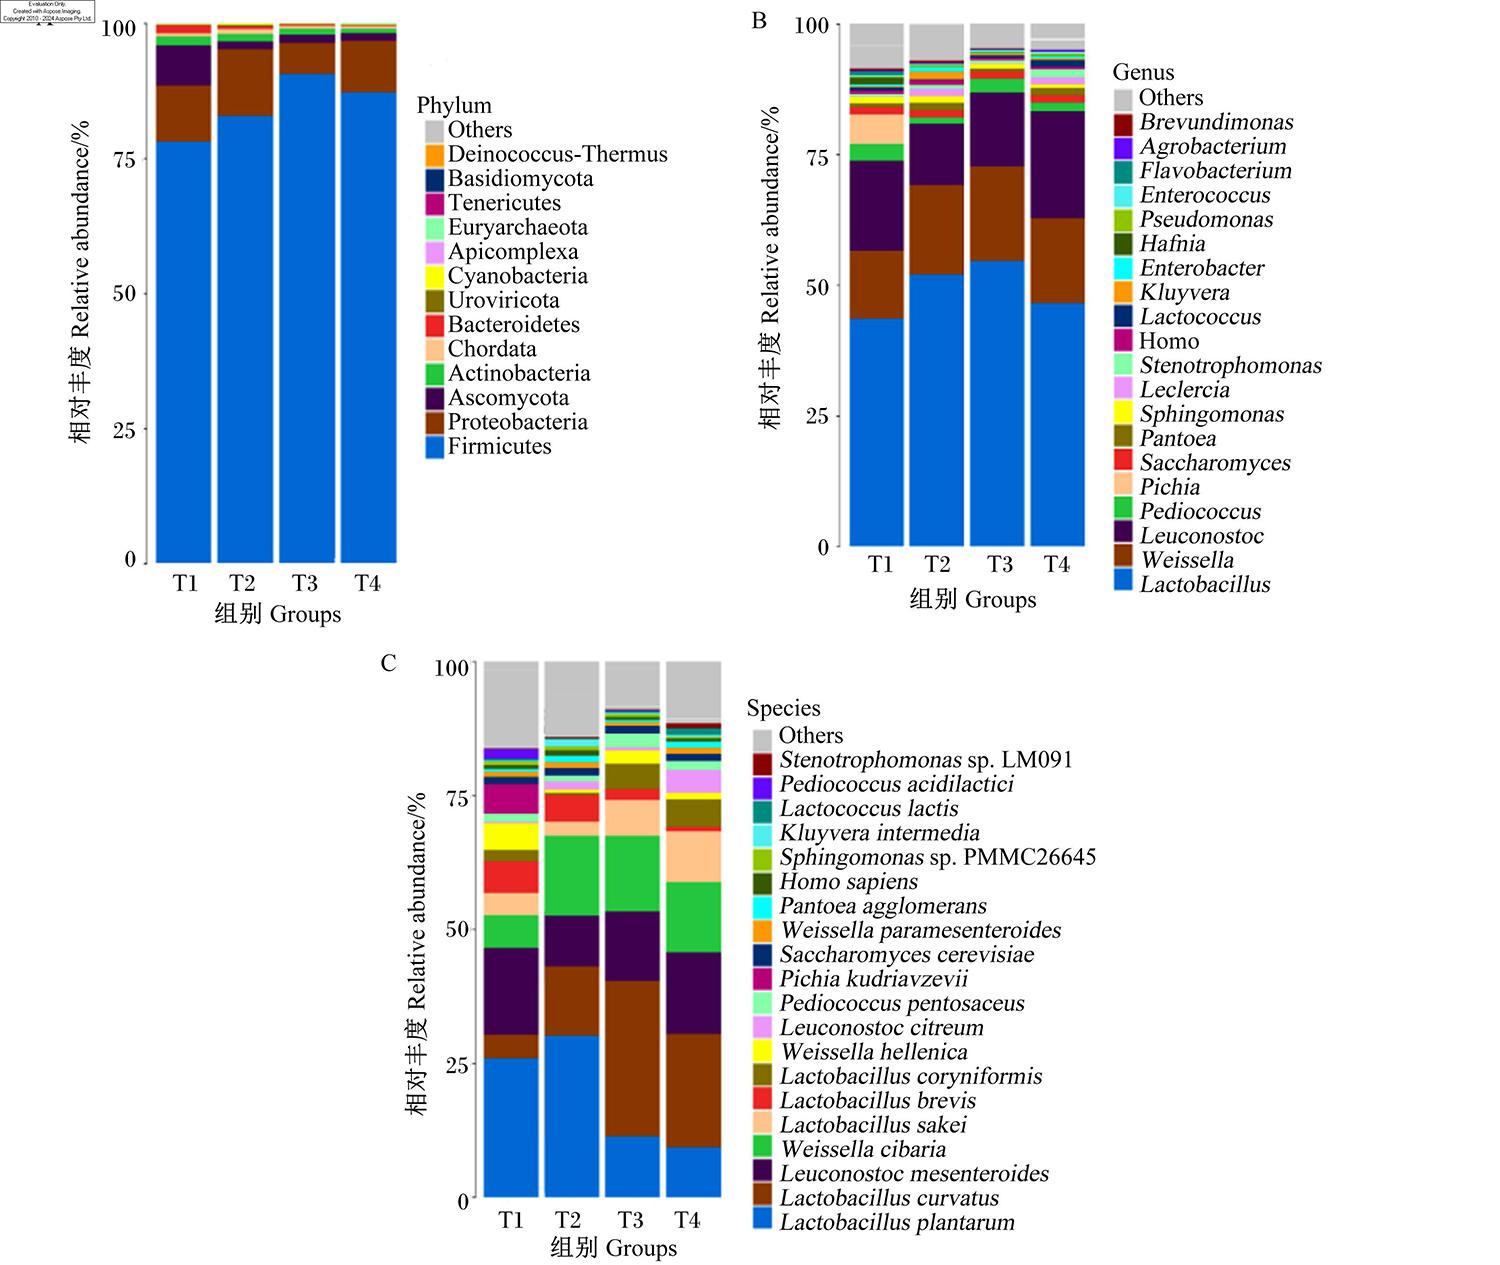
图3-A所示,在门水平上,厚壁菌门(Firmicutes)是4组中的优势菌门,其在T1、T2、T3和T4组中的相对丰度分别为78%、82%、90%和87%;相对丰度次之的为变形菌门(Proteobacteria)、子囊菌门(Ascomycota)和放线菌门(Actinobacteria)。
图3 FTMR微生物群落门(A)、属(B)、种(C)水平组成

Phylum:门;Others:其他;Deinococcus-Thermus:异常球菌-栖热菌门;Basidiomycota:担子菌门;Tenericutes:软壁菌门;Euryarchaeota:广古菌门;Apicomplexa:顶复门;Cyanobacteria:蓝细菌门;Uroviricota:尾噬菌体门;Bacteroidetes:拟杆菌门;Actinobacteria:放线菌门;Ascomycota:子囊菌门;Proteobacteria:变形菌门;Firmicutes:厚壁菌门;Genus:属;Brevundimonas:短波单胞菌属;Agrobacterium:农杆菌属;Flavobacterium:黄杆菌属;Enterococcus:肠球菌属;Pseudomonas:假单胞菌属;Hafnia:哈夫尼菌属;Enterobacter:肠杆菌属;Kluyvera:克吕沃尔氏菌属;Lactococcus:乳球菌属;Stenotrophomonas:寡养单胞菌属;Leclercia:勒克氏菌属;Sphingomonas:鞘氨醇单胞菌属;Pantoea:泛菌属;Saccharomyces:酵母菌属;Pichia:毕赤酵母属;Pediococcus:片球菌属;Leuconostoc:明串珠菌属;Weissella:魏斯氏菌属;Lactobacillus:乳杆菌属;Species:种;Stenotrophomonas sp. LM091:寡养单胞菌未定种 LM091;Pediococcus acidilactici:乳酸片球菌;Lactococcus lactis:乳酸乳球菌;Kluyvera intermedia:居中克吕沃尔氏菌;Sphingomonas sp. PMMC26645:鞘氨醇单胞菌未定种 PMMC26645;Pantoea agglomerans:成团泛生菌;Weissella paramesenteroides:类肠膜魏斯氏菌;Saccharomyces cerevisiae:酿酒酵母;Pichia kudriavzevii:库德毕赤酵母;Pediococcus pentosaceus:戊糖片球菌;Leuconostoc citreum:柠檬明串珠菌;Weissella hellenica:赫伦魏斯氏菌;Lactobacillus coryniformis:棒状乳杆菌;Lactobacillus brevis:短乳杆菌;Lactobacillus sakei:沙克乳杆菌;Weissella cibaria:西巴利亚魏斯氏菌;Leuconostoc mesenteroides:肠膜明串珠菌;Lactobacillus curvatus:弯曲乳杆菌;Lactobacillus plantarum:植物乳杆菌。图6同 the same as Fig.6

Fig.3 FTMR microbial community composition at phylum (A), genus (B) and species (C) levels

图3-B所示,在属水平上,乳杆菌属(Lactobacillus)、魏斯氏菌属(Weissella)和明串珠菌属(Leuconostoc)为4组中的优势菌属,其中乳杆菌属在T1、T2、T3和T4组中的相对丰度分别为43%、51%、54%和46%,魏斯氏菌属分别为12%、17%、18%和16%;相对丰度次之的为片球菌属(Pediococcus)和毕赤酵母属(Pichia)等。种水平上的物种组成及相对丰度如图3-C表4所示,植物乳杆菌(Lactobacillus plantarum)、弯曲乳杆菌(Lactobacillus curvatus)、肠膜明串珠菌(Leuconostoc mesenteroides)、西巴利亚魏斯氏菌(Weissella cibaria)为4组中的优势菌种。其中,T3和T4组植物乳杆菌相对丰度显著低于T1和T2组(P<0.05);T3组弯曲乳杆菌相对丰度显著高于T1、T2和T4组(P<0.05);T2组肠膜明串珠菌的相对丰度显著低于T1、T3和T4组(P<0.05);T2、T3和T4组西巴利亚魏斯氏菌的相对丰度显著高于T1组(P<0.05)。
表4 虉草与精料补充料比例对FTMR微生物群落种水平相对丰度的影响

Table 4 Effects of ratios of reed canary grass to concentrate supplement on relative abundance of FTMR microbial communities at species level%


Phylum

Genus

Species
组别 Groups P
P-value
T1 T2 T3 T4
厚壁菌门
Firmicutes
乳杆菌属
Lactobacillus
植物乳杆菌
Lactobacillus plantarum
24.47±3.55a 25.21±2.58a 10.92±2.23b 9.59±1.41b <0.001
乳杆菌属
Lactobacillus
弯曲乳杆菌
Lactobacillus curvatus
3.75±2.75c 13.42±2.34b 28.11±2.55a 19.95±4.84b 0.037
明串珠菌属
Leuconostoc
肠膜明串珠菌
Leuconostoc mesenteroides
16.53±5.55a 8.94±0.78b 16.66±0.41a 20.37±3.93a 0.004
魏斯氏菌属
Weissella
西巴利亚魏斯氏菌
Weissella cibaria
5.54±0.56c 14.53±1.65a 13.67±2.46ab 11.24±3.28b 0.047
乳杆菌属
Lactobacillus
沙克乳杆菌
Lactobacillus sakei
5.84±0.47 2.24±0.05 5.76±2.70 9.35±2.53 0.168
乳杆菌属
Lactobacillus
短乳杆菌
Lactobacillus brevis
6.40±1.18a 4.99±0.71a 2.05±1.22b 0.61±0.31b <0.001
乳杆菌属
Lactobacillus
棒状乳杆菌
Lactobacillus coryniformis
1.74±0.44 0.41±0.07 4.51±0.92 4.77±0.08 0.070
魏斯氏菌属
Weissella
赫伦魏斯氏菌
Weissella hellenica
4.98±1.82a 0.56±0.08b 2.23±0.89b 1.18±0.35b 0.002
明串珠菌属
Leuconostoc
柠檬明串珠菌
Leuconostoc citreum
0.24±0.07 1.67±0.17 0.57±0.34 3.50±0.66 0.246
片球菌属
Pediococcus
戊糖片球菌
Pediococcus pentosaceus
1.48±0.46 1.12±0.19 2.26±1.71 1.29±0.11 0.460
魏斯氏菌属
Weissella
类肠膜魏斯氏菌
Weissella paramesenteroides
0.78±0.09 1.20±0.21 0.76±0.04 0.77±0.17 0.722
乳球菌属
Lactococcus
乳酸乳球菌
Lactococcus lactis
0.53±0.02 0.11±0.03 0.28±0.01 1.01±0.05 0.337
片球菌属
Pediococcus
乳酸片球菌
Pediococcus acidilactici
1.38±0.12 0.05±0.01 0.07±0.01 0.05±0.01 0.114
子囊菌门
Ascomycota
酵母菌属
Saccharomyces
酿酒酵母
Saccharomyces cerevisiae
1.35±0.70 1.17±0.32 1.27±0.38 1.14±0.04 0.961


变形菌门
Proteobacteria
泛菌属
Pantoea
成团泛生菌
Pantoea agglomerans
0.34±0.01b 1.23±0.09a 0.41±0.08b 0.83±0.08a 0.001
克吕沃尔氏菌属
Kluyvera
居中克吕沃尔氏菌
Kluyvera intermedia
0.21±0.11b 1.36±0.09a 0.28±0.09b 0.28±0.06b <0.001
其他
Others
其他
Others
其他
Others
23.21±5.89a 20.05±2.88ab 10.20±2.71b 13.32±3.29ab 0.042

2.4 虉草与精料补充料比例对FTMR中代谢物的影响

2.4.1 FTMR中代谢物的PCA
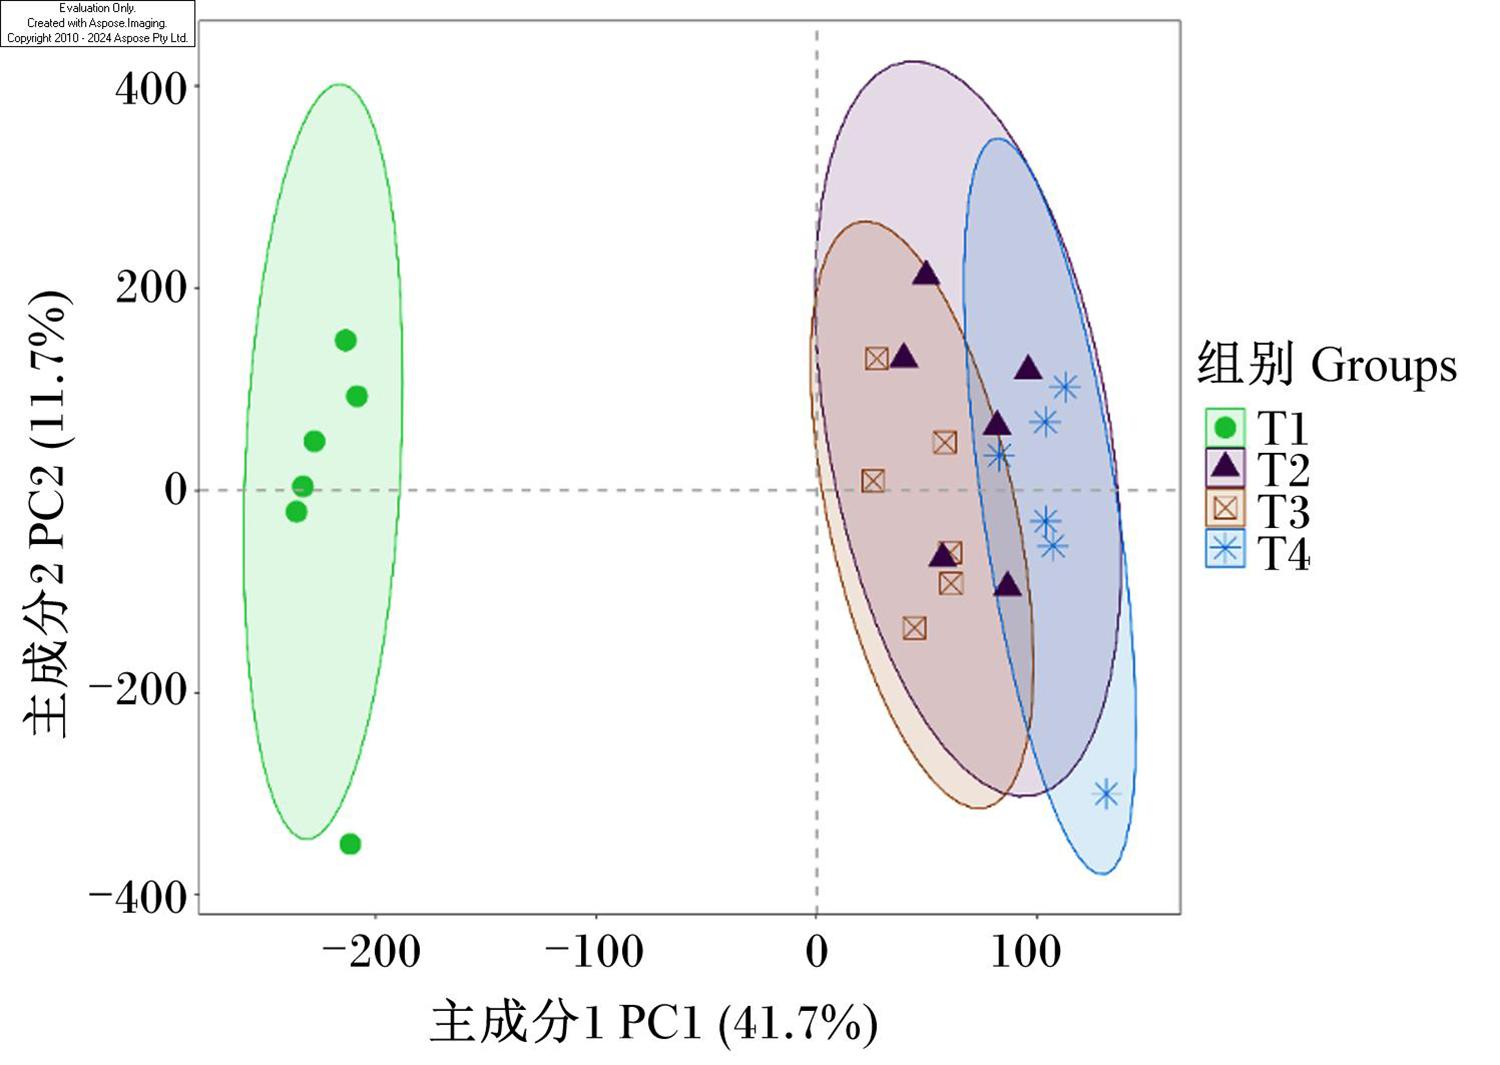
PCA结果(图4)显示,PC1和PC2的贡献率分别为41.7%和11.7%,T1组样本远离T2、T3和T4组,分布于第2、3象限,而T2、T3和T4组样本分布于第1、4象限,表明T1组与T2、T3和T4组的代谢物谱存在明显差异。
图4 FTMR中代谢物的主成分分析

Fig.4 PCA of metabolites in FTMR

2.4.2 FTMR中差异代谢物分析

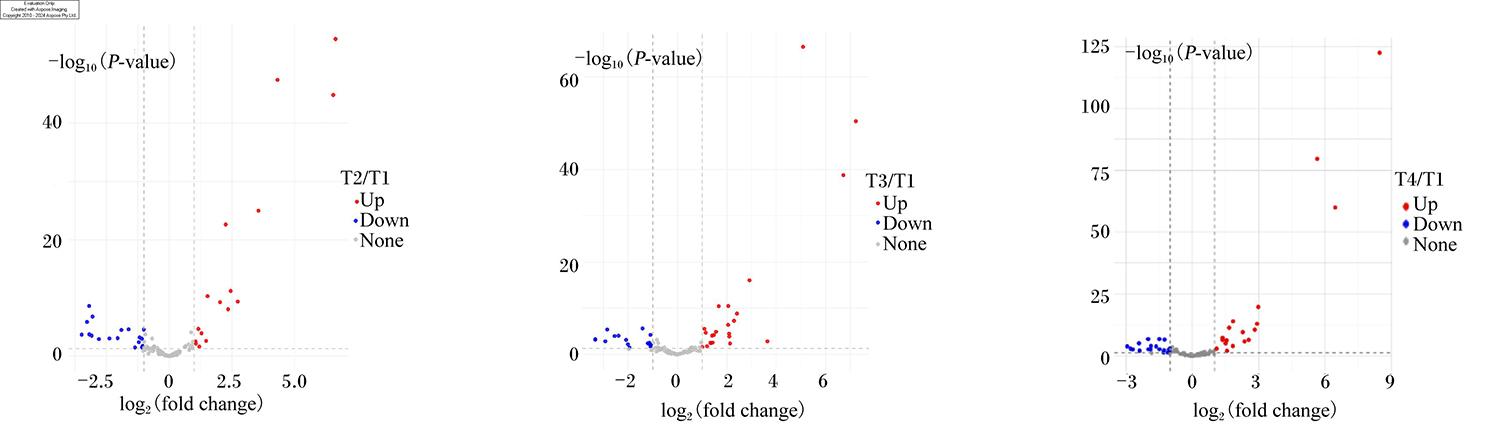
图5表5所示,通过计算T2、T3和T4组与T1组代谢物的FC和显著性P值,筛选得到差异代谢物。与T1组相比,T2组有16种代谢物上调、18种代谢物下调,T3组有23种代谢物上调、17种代谢物下调,T4组有19种代谢物上调、19种代谢物下调;3组相较于T1组的上调与下调差异代谢物种类高度相似。其中,含量较高的上调代谢物包括水杨酸(salicylic acid)、4-羟基苯甲酸(4-hydroxybenzoic acid)、大豆皂甙Ⅰ(soyasaponin Ⅰ)、花生四烯酸(arachidonic acid)、多巴胺(dopamine)和(-)-茉莉酸[(-)-jasmonic acid]等;含量较高的下调代谢物有酪氨酸(tyrosine)、莨菪亭(scopoletin)、芥子酸盐(sinapate)、甘露醇(mannitol)、绿原酸盐(chlorogenate)、三裂鼠尾草素(tricetin)、芦丁(rutin)、桑色素(morin)和二氢辣椒素(dihydrocapsaicin)等。
图5 差异代谢物火山图

T2/T1:T2组vs. T1组 T2 group vs. T1 group;T3/T1:T3组vs. T1组 T3 group vs. T1 group;T4/T1:T4组vs. T1组 T4 group vs. T1 group;Up:上调 up-regulated;Down:下调 down-regulated;None:无显著差异 no significant difference;-log10(P-value):-log10(P值);log2(fold change):log2(差异倍数)。

Fig.5 Volcano plot of differential metabolites

表5 虉草与精料补充料比例对FTMR中代谢物的影响

Table 5 Effects of ratios of reed canary grass to concentrate supplement on metabolites of FTMR

项目
Items
趋势
Trend
T2组vs. T1组
T2 group vs. T1 group
T3组vs. T1组
T3 group vs. T1 group
T4组vs. T1组
T4 group vs. T1 group
log2(差异倍数)
log2
(fold change)
P
P-value
log2(差异倍数)
log2
(fold change)
P
P-value
log2(差异倍数)
log2
(fold change)
P
P-value
芥子碱 Sinapine 上调 7.222 <0.001 4.569 <0.001 6.127 <0.001
大豆皂苷Ⅰ
Soyasaponin Ⅰ
上调 6.718 0.002 6.228 <0.001 6.226 0.001
庚二酸盐 Pimelate 上调 5.085 0.001 4.085 <0.001 6.001 <0.001
桦木酸 Betulinic acid 上调 3.644 0.001 2.112 0.001 5.912 0.001
水杨酸 Salicylic acid 上调 3.245 <0.001 4.109 <0.001 3.157 <0.001
4-羟基苯甲酸
4-hydroxybenzoic acid
上调 2.881 <0.001 3.281 <0.001 1.831 0.019
多巴胺 Dopamine 上调 2.288 0.006 2.884 <0.001 2.569 <0.001
金合欢素 Acacetin 上调 2.129 0.005 2.299 0.004 3.186 <0.001
(2Z,4Z)-己-2,4-
二烯二酸
(2Z,4Z)-hexa-
2,4-dienedioic acid
上调 2.093 <0.001 3.119 <0.001 2.005 0.005
赖氨酸 Lysine 上调 1.821 0.011 1.561 <0.001 1.428 <0.001
花生四烯酸
Arachidonic acid
上调 1.671 <0.001 3.631 <0.001 1.447 <0.001
脯氨酸 Proline 上调 1.223 <0.001 1.782 <0.001 2.196 0.011
(-)-茉莉酸
(-)-jasmonic acid
上调 1.198 0.027 1.118 0.017 1.198 <0.001
反油酸 Vaccenic acid 上调 1.093 <0.001 1.003 <0.001 1.015 <0.001
新枞酸 Neoabietic acid 上调 1.006 0.025 2.884 0.024 1.019 0.014
北极碱 Norajmaline 下调 -1.073 0.013 -1.779 0.011 -1.582 0.021
山梨糖醇 Sorbitol 下调 -1.095 0.009 -1.452 0.008 -1.088 0.008
番茄红素 Lycopene 下调 -1.097 0.009 -2.997 0.019 -1.192 <0.001
N-甲基酪胺
N-methyltyramine
下调 -1.097 <0.001 -1.111 <0.001 -2.652 <0.001
甘露醇 Mannitol 下调 -1.137 0.004 -1.183 0.003 -1.245 0.001
鲁斯可皂苷元
Ruscogenin
下调 -1.199 0.004 -1.337 0.004 -1.957 0.021
十二烷二酸
Dodecanedioic acid
下调 -1.415 <0.001 -1.452 <0.001 -1.411 <0.001
莨菪亭 Scopoletin 下调 -2.006 0.006 -2.501 0.006 -2.994 0.006
绿原酸盐 Chlorogenate 下调 -2.081 0.002 -1.234 0.001 -1.342 0.002
酪氨酸 Tyrosine 下调 -2.389 <0.001 -3.692 <0.001 -2.227 <0.001
二氢辣椒素
Dihydrocapsaicin
下调 -2.544 0.005 -2.551 <0.001 -2.577 0.009
芥子酸盐 Sinapate 下调 -2.847 0.001 -2.679 <0.001 -1.893 <0.001
芦丁 Rutin 下调 -2.924 <0.001 -2.124 0.001 -2.002 0.001
桑色素 Morin 下调 -3.332 0.001 -3.225 0.001 -3.957 <0.001
三裂鼠尾草素 Tricetin 下调 -3.331 <0.001 -2.981 0.001 -2.391 0.001

2.5 FTMR中差异微生物与差异代谢物的相关性分析

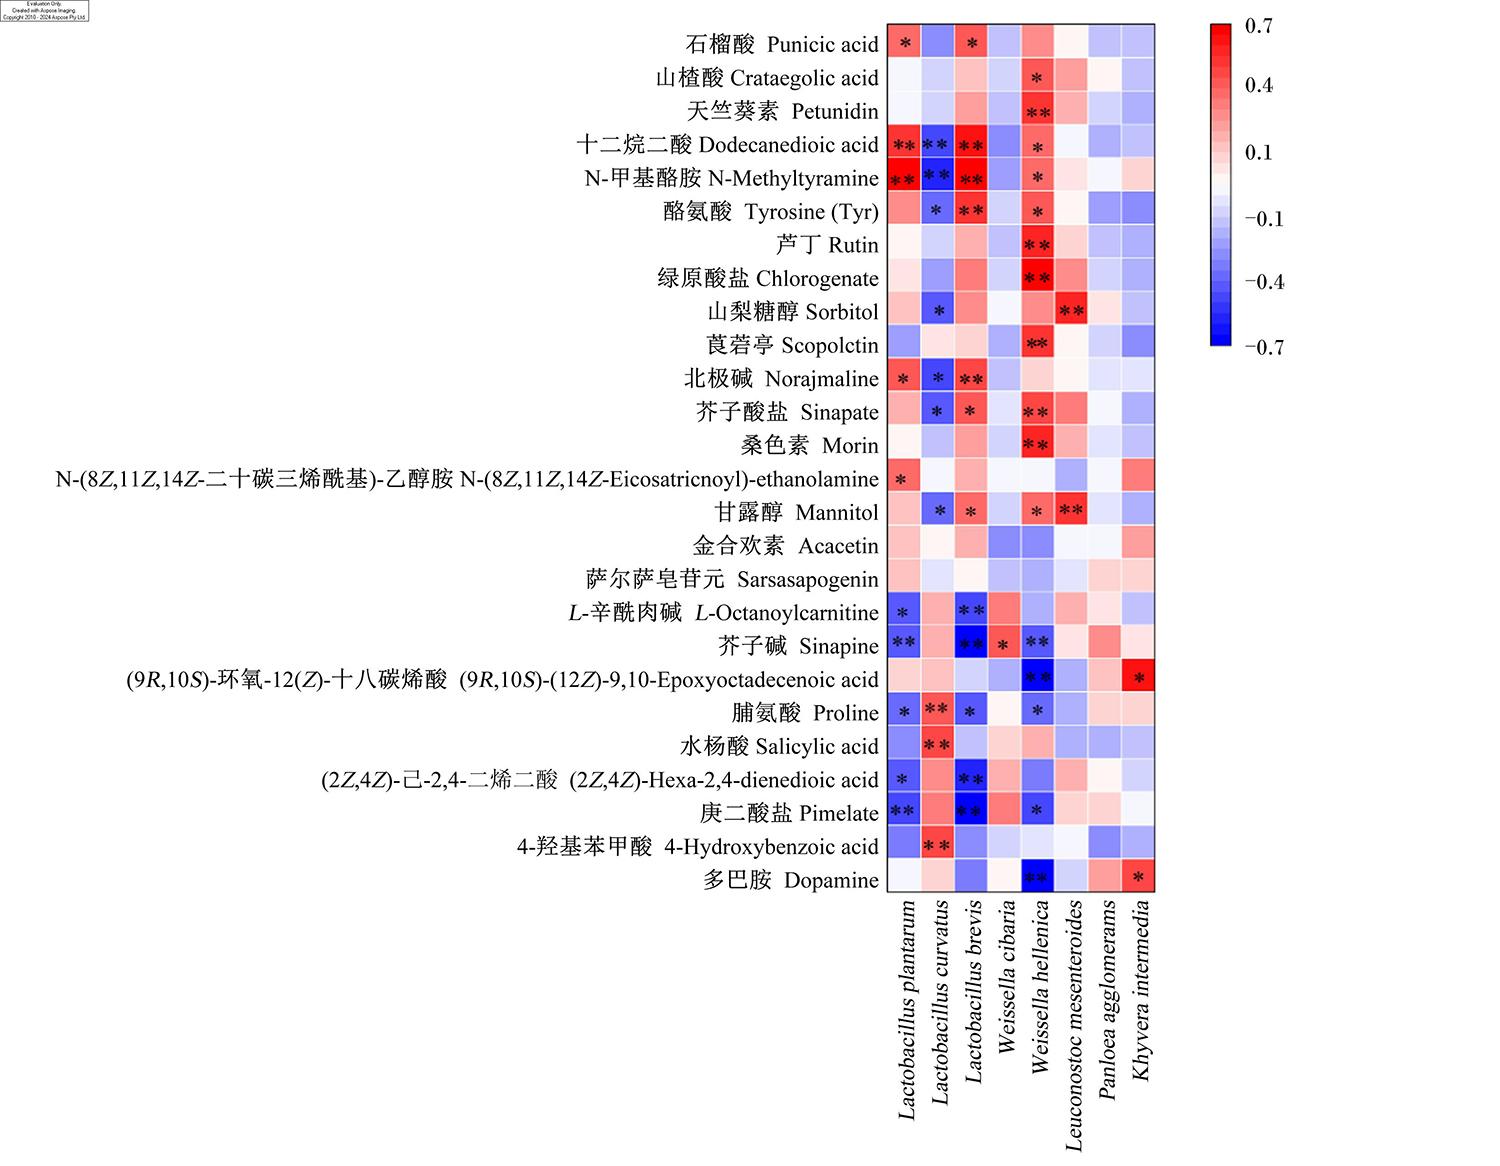
图6所示,选取组间相对丰度差异显著的菌种与差异代谢物进行相关性分析,结果表明,植物乳杆菌相对丰度与脯氨酸(proline)(r=-0.489,P<0.05)、芥子碱(sinapine)(r=-0.598,P<0.01)、庚二酸盐(pimelate)(r=-0.671,P<0.01)等代谢物含量呈显著或极显著负相关,与N-甲基酪胺(N-methyltyramine)(r=0.652,P<0.01)、十二烷二酸(dodecanedioic acid)(r=0.667,P<0.01)等代谢物含量呈极显著正相关。弯曲乳杆菌相对丰度与酪氨酸(r=-0.501,P<0.05)、N-甲基酪胺(r=-0.683,P<0.01)、十二烷二酸(r=-0.635,P<0.01)等代谢物含量呈显著或极显著负相关,与水杨酸(r=0.642,P<0.01)、4-羟基苯甲酸(r=0.617,P<0.01)、脯氨酸(r=0.499,P<0.01)等代谢物含量呈极显著正相关。赫伦魏斯氏菌(Weissella hellenica)与多巴胺(r=-0.648,P<0.01)、庚二酸盐(r=-0.423,P<0.05)、芥子碱(r=-0.501,P<0.01)、脯氨酸(r=-0.512,P<0.05)等代谢物含量呈显著或极显著负相关,与甘露醇(r=0.512,P<0.05)、桑色素(r=0.679,P<0.01)、芥子酸盐(r=0.664,P<0.01)、绿原酸盐(r=0.691,P<0.01)等代谢物含量呈显著或极显著正相关。
图6 FTMR中差异微生物与差异代谢物的相关性热图

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.6 Heatmap of correlation between FTMR differential microorganisms and differential metabolites

* represents significant correlation (P<0.05), ** represents extremely significant correlation (P<0.01).

3 讨论

3.1 虉草与精料补充料比例对FTMR营养成分的影响

DM含量是评价FTMR品质的重要指标,青贮原料中DM含量过低易导致梭菌等有害菌产生,使得发酵过程中pH升高,降低青贮饲料品质[13]。青藏高原的低温环境会抑制发酵有益菌的生长繁殖,导致虉草单独青贮难以成功。因此,将虉草与DM和WSC含量较高的精料补充料按一定比例混合制成FTMR,可有效解决这一问题。Yang等[14]以燕麦为青贮原料并添加精料补充料制作FTMR,结果显示饲料pH和NH3-N/TN降低,青贮品质提高。本试验中,虉草与精料补充料混合原料及FTMR的DM含量均随精料补充料比例的增加而升高。与未发酵原料相比,发酵60 d后各组FTMR的DM含量均有所降低,原因在于随着发酵过程的进行,微生物数量不断增加,持续消耗饲料中的营养物质,将蛋白质、WSC等大分子物质转化为LA等小分子物质,并产生大量的水,进而导致DM含量降低[15]。此外,随着精料补充料比例的增加,虉草与精料补充料混合原料及FTMR的CP含量均呈线性升高,NDF和ADF含量呈线性降低,这是因为精料补充料中CP含量高于虉草,而纤维含量较低。各组FTMR的NDF和ADF含量均较未发酵原料有所升高,原因在于发酵过程中WSC等营养物质被大量消耗,使得NDF和ADF的相对含量上升,该结果与Yang等[14]的研究报道一致;而CP含量在发酵前后变化较小,表明制作FTMR可有效保留原料中的蛋白质组分。

3.2 虉草与精料补充料比例对FTMR发酵品质的影响

pH是评价FTMR发酵品质的重要指标。在发酵过程中,乳酸菌等有益菌在适宜的厌氧环境中大量繁殖,同时产生有机酸,使青贮体系pH迅速下降,进而抑制有害菌的生长。当pH降至4.2以下时,有害菌活动几乎被完全抑制,青贮发酵进入稳定阶段,营养品质变化较小[16]。本试验中,添加精料补充料后FTMR的pH均低于4.2,其中以T3组最低,而T1组pH为4.3,这与有机酸检测结果相符,T2、T3和T4组FTMR的LA含量均高于T1组。在发酵过程中,LA主要由乳杆菌属微生物产生,可促使青贮体系pH迅速下降[17]。本试验中,T2、T3和T4组的乳杆菌属相对丰度均高于T1组,这与各组中pH和LA含量的变化趋势一致。添加精料补充料后FTMR的pH更低,是因为精料补充料中WSC含量更高,而有益菌发酵过程需要WSC作为底物以产生更多有机酸[18]。有研究报道,苜蓿青贮中添加果糖后,其pH低于未添加组,LA含量则高于未添加组[9],与本试验结果相符。值得注意的是,当虉草与精料补充料比例为40∶60时,相较于比例为50∶50时,其pH显著升高,LA含量显著降低,这一现象可能与原料含水量的变化相关:当精料补充料比例升高时,T1、T2、T3和T4组原料的含水量逐渐降低,依次为64%、61%、54%和48%。有研究表明,低水分含量会影响青贮微生物的活性和代谢速率,从而抑制有机酸的积累[19]。NH3-N的产生主要源自植物细胞呼吸和微生物代谢过程,是评估青贮饲料中蛋白质降解程度的核心指标,一般认为NH3-N/TN≤10%为优质青贮[20-21]。本试验中,各组FTMR的NH3-N/TN均小于10%,其中T3组NH3-N/TN最低,这表明该组发酵效果良好,饲料原料中的蛋白质被梭菌等有害菌分解的程度较低。综合考虑发酵后FTMR的pH、WSC和LA含量以及NH3-N/TN等指标,在本试验条件下,虉草与精料补充料比例为50∶50时制作的FTMR发酵品质最佳。

3.3 虉草与精料补充料比例对FTMR微生物群落的影响

青贮饲料微生物的多样性、结构和组成是评定其发酵品质的指标之一[22]。Wang等[23]研究表明,在青贮饲料中加入糖蜜可降低其pH,同时降低微生物多样性。本试验结果表明,与T1组相比,T2、T3和T4组α多样性指数(Chao1、Simpson和ACE指数)并无显著变化,这与Wang等[23]的试验结果不一致,推测原因是本研究中T1组的pH虽高于其他组,但仍接近优质青贮的pH范围,同样能有效抑制杂菌生长。而β多样性分析结果表明,各组间的菌群结构存在明显差异,这表明添加精料补充料可影响FTMR微生物群落结构。
已有研究证实,厚壁菌门为青贮饲料中的优势菌门[24],该菌门包含大量乳酸菌,可通过产生LA降低青贮体系pH,因此其相对丰度越高,青贮饲料的发酵品质越好。本试验中,4组的优势菌门均为厚壁菌门,相对丰度均达到75%以上,其中T3组的厚壁菌门相对丰度最高,达90%,由此表明T3组的发酵状态优于T1、T2和T4组,发酵品质可能最佳。在属水平上,乳杆菌属是青贮饲料中的优势菌属[25-26],该菌属在发酵过程中产生LA,可有效抑制有害菌属的生长;而梭菌属、肠杆菌属(Enterobacter)等发酵有害菌会与乳杆菌属竞争营养底物,加速饲料营养物质的消耗[27]。本试验中各组的优势菌属均为乳杆菌属,相对丰度均超过40%,其次为魏斯氏菌属、明串珠菌属等可产生LA的有益菌属。其中,魏斯氏菌属隶属于厚壁菌门、芽孢杆菌纲、乳杆菌目、明串珠菌科,同乳酸菌一样,可通过产生LA参与青贮发酵[28]。Zhang等[26]也指出,乳杆菌属和魏斯氏菌属为青贮饲料中的优势菌属。与T1、T2和T4组相比,T3组中上述3类有益菌属的相对丰度均较高,这一结果与发酵参数中pH和有机酸含量的检测结果相吻合。与添加精料补充料组相比,T1组中肠杆菌属和毕赤酵母属等杂菌的相对丰度更高,这是因为T1组有益菌的相对丰度较低,导致杂菌生长较多。WSC可为乳酸菌发酵提供底物,促进LA积累,抑制杂菌生长[29],这也解释了添加精料补充料后,乳杆菌属等有益菌相对丰度升高、杂菌相对丰度降低的试验结果。在种水平上,本试验中T1组的植物乳杆菌相对丰度较高,而T3和T4组中弯曲乳杆菌相对丰度较高。在未添加外源菌种的情况下,组间产生这种差异,可能与不同的发酵原料有关,也可能与各菌群之间复杂的互作关系有关。弯曲乳杆菌为兼性异型发酵乳酸菌,据Terán等[30]报道,弯曲乳杆菌在青贮饲料发酵中可成为优势菌种,且在低温环境中的适应能力强于其他乳酸菌。本研究中,T3组弯曲乳杆菌相对丰度显著高于T1、T2和T4组,与各项发酵参数的变化相对应,是该组发酵品质最优的重要原因之一。

3.4 虉草与精料补充料比例对FTMR中代谢物的影响

常规青贮指标检测主要聚焦于挥发性脂肪酸(AA、PA、BA)和NH3-N等少数核心产物[8,31]。而代谢组学可同时检测数百至上千种小分子代谢产物,包括各类有机酸、氨基酸、糖类、胺类、脂质衍生物等,能更全面地反映青贮发酵的整体代谢变化[32]。通过微生物群落与代谢物间的关联分析,可明确特定微生物(如特定乳酸菌菌株)与关键代谢物的对应关系,进而助力高效青贮微生物菌株的筛选。乳酸菌在青贮过程中会产生一些具有抗菌活性的代谢物,包括4-羟基苯甲酸、3-羟基癸酸(3-hydroxydecanoic acid)、乙醛(acetaldehyde)、3-羟基十四烷酸(3-hydroxytetradecanoic acid)、香草酸(vanillic acid)、2,3-丁二酮(2,3-butanedione)和细菌素(bacteriocin)等[33]。本试验中,所有试验组共检测出201种代谢物,包括有机酸、氨基酸、类固醇、萜类化合物、脂质、肽类、黄酮化合物和脂肪酰基等;与T1组相比,添加精料补充料组中差异代谢物主要包括甘露醇、芥子酸盐、芥子碱、水杨酸、4-羟基苯甲酸、绿原酸盐、酪氨酸和脯氨酸等。已有研究报道,绿原酸盐、4-羟基苯甲酸、水杨酸等物质可在牧草青贮中检出,且这类物质具有抑菌活性,能抑制有害微生物生长,减少青贮饲料的营养物质损失,同时抑制霉菌毒素的产生[34]
Wang等[9]探究了果糖、果胶和淀粉处理对苜蓿青贮代谢物的影响,发现添加果糖、果胶和淀粉组与对照组之间分别有44、37、4种差异代谢物。Guo等[35]研究接种与未接种植物乳杆菌的苜蓿青贮差异代谢物,共检测到102种差异代谢物,包括天冬氨酸(aspartic acid)、LA、甘油(glycerol)、琥珀酸(succinic acid)、苯甲酸(benzoic acid)、腺嘌呤(adenine)、阿拉伯糖醇(arabitol)和甘露醇等。本试验中,与T1组相比,T3组中花生四烯酸、水杨酸、4-羟基苯甲酸、芥子碱和金合欢素等代谢物含量上调,酪氨酸、芥子酸盐、甘露醇、绿原酸盐等代谢物含量下调。水杨酸等物质具有抑制有害细菌生长的功能,其含量上升表明了乳酸菌等有益菌生长状态更好,杂菌数量更低,这与本试验中微生物群落分析结果相符,Xu等[32]的研究也得到了相似结果。为筛选关键代谢物并明确代谢物与微生物的内在关联,本研究将差异代谢物与组间差异微生物进行了相关性分析,结果表明,弯曲乳杆菌相对丰度与脯氨酸、4-羟基苯甲酸、水杨酸含量呈显著或极显著正相关,与酪氨酸含量呈显著负相关。弯曲乳杆菌为青贮发酵中的重要菌种,与其相对丰度呈正相关的水杨酸可抑制杂菌生长,4-羟基苯甲酸同样具有抑菌性,这表明青贮体系中微生物与代谢物之间存在潜在协同作用。此外,植物乳杆菌相对丰度与十二烷二酸、N-甲基酪胺含量呈极显著正相关。N-甲基酪胺属于氮代谢相关产物,与T1组相比,T3组植物乳杆菌相对丰度下降,伴随N-甲基酪胺含量下调,间接表明该组青贮体系氮代谢强度减弱,这与本试验中观察到的T3组NH3-N/TN降低相符。

4 结论

在本试验条件下,添加精料补充料可有效促进虉草FTMR中乳杆菌属的生长繁殖,提升水杨酸、4-羟基苯甲酸、花生四烯酸等具有抑制杂菌作用的代谢物含量。当虉草与精料补充料比例为50∶50时,FTMR中LA含量最高,pH和NH3-N/TN最低,发酵调控效果最优。因此,在青藏高原地区利用虉草制作FTMR时,建议虉草与精料补充料的比例为50∶50。
[1]
LONG R J, ZHANG D G, WANG X, et al. Effect of strategic feed supplementation on productive and reproductive performance in yak cows[J]. Preventive Veterinary Medicine, 1999, 38(2/3):195-206.

[2]
CHEN L Y, LI P, GOU W L, et al. Effects of inoculants on the fermentation characteristics and in vitro digestibility of reed canary grass (Phalaris arundinacea L.) silage on the Qinghai-Tibetan plateau[J]. Animal Science Journal, 2020, 91(1):e13364.

[3]
KAMMES K L, HEEMINK G B H, ALBRECHT K A, et al. Utilization of Kura clover-reed canarygrass silage versus alfalfa silage by lactating dairy cows[J]. Journal of Dairy Science, 2008, 91(8):3138-3144.

[4]
WILKINSON J M, RINNE M. Highlights of progress in silage conservation and future perspectives[J]. Grass and Forage Science, 2017, 73(1):40-52.

[5]
LIU Q H, SHAO T, BAI Y F. The effect of fibrolytic enzyme,Lactobacillus plantarum and two food antioxidants on the fermentation quality,alpha-tocopherol and beta-carotene of high moisture Napier grass silage ensiled at different temperatures[J]. Animal Feed Science and Technology, 2016, 221( Pt A):1-11.

[6]
LIU Q H, LI X Y, DESTA S T, et al. Effects of Lactobacillus plantarum and fibrolytic enzyme on the fermentation quality and in vitro digestibility of total mixed rations silage including rape straw[J]. Journal of Integrative Agriculture, 2016, 15(9):2087-2096.

[7]
GOURAMA H, BULLERMAN L B. Inhibition of growth and aflatoxin production of Aspergillus flavus by Lactobacillus species[J]. Journal of Food Protection, 1995, 58(11):1249-1256.

[8]
KUNG L M Jr, SHAVER R D, GRANT R J, et al. Silage review:interpretation of chemical,microbial,and organoleptic components of silages[J]. Journal of Dairy Science, 2018, 101(5):4020-4033.

[9]
WANG B, GAO R, WU Z, et al. Functional analysis of sugars in modulating bacterial communities and metabolomics profiles of Medicago sativa silage[J]. Frontiers in Microbiology, 2020, 11:641.

[10]
MURPHY R P. A method for the extraction of plant samples and the determination of total soluble carbohydrates[J]. Journal of the Science of Food and Agriculture, 1958, 9(11):714-717.

[11]
HUHTANEN P, CABEZAS-GARCIA E H, KRIZSAN S J, et al. Evaluation of between-cow variation in milk urea and rumen ammonia nitrogen concentrations and the association with nitrogen utilization and diet digestibility in lactating cows[J]. Journal of Dairy Science, 2015, 98(5):3182-3196.

[12]
TANG Y H, DOU Q, LUO B, et al. Effects of wilting and exogenous lactic acid bacteria on the fermentation quality and microbial community of Plantago lanceolata silage[J]. Fermentation, 2024, 10(11):536.

[13]
BARMAKI S, ALAMOUTI A A, KHADEM A A, et al. Effectiveness of chopped Lucerne hay as a moisture absorbent for low dry-matter maize silage:effluent reduction,fermentation quality and intake by sheep[J]. Grass and Forage Science, 2018, 73(2):406-412.

[14]
YANG H, WANG B, ZHANG Q, et al. Improvement of fermentation quality in the fermented total mixed ration with oat silage[J]. Microorganisms, 2021, 9(2):420.

[15]
KONDO M, SHIMIZU K, JAYANEGARA A, et al. Changes in nutrient composition and in vitro ruminal fermentation of total mixed ration silage stored at different temperatures and periods[J]. Journal of the Science of Food and Agriculture, 2016, 96(4):1175-1180.

[16]
WANG T W, ZHANG J Q, SHI W X, et al. Dynamic changes in fermentation quality and structure and function of the microbiome during mixed silage of Sesbania cannabina and sweet sorghum grown on saline-alkaline land[J]. Microbiology Spectrum, 2022, 10(5):e0248322.

[17]
DE VRIEZE J, PINTO A J, SLOAN W T, et al. The active microbial community more accurately reflects the anaerobic digestion process:16S rRNA (gene) sequencing as a predictive tool[J]. Microbiome, 2018, 6(1):63.

[18]
JIE Z, DONG Z H, LI J F, et al. Effects of sugar sources and doses on fermentation dynamics,carbohydrates changes,in vitro digestibility and gas production of rice straw silage[J]. Italian Journal of Animal Science, 2019, 18(1):1345-1355.

[19]
ZHENG M L, NIU D Z, JIANG D, et al. Dynamics of microbial community during ensiling direct-cut alfalfa with and without LAB inoculant and sugar[J]. Journal of Applied Microbiology, 2017, 122(6):1456-1470.

[20]
COSTA R F, DE ASSIS PIRES D A, ALMEIDA MOURA M M, et al. Agronomic characteristics of sorghum genotypes and nutritional values of silage[J]. Acta Scientiarum Animal Sciences, 2016, 38(2):127-133.

[21]
LI X J, TIAN J P, ZHANG Q, et al. Effects of mixing red clover with alfalfa at different ratios on dynamics of proteolysis and protease activities during ensiling[J]. Journal of Dairy Science, 2018, 101(10):8954-8964.

[22]
PARVIN S, NISHINO N. Succession of lactic acid bacteria in wilted rhodesgrass silage assessed by plate culture and denaturing gradient gel electrophoresis[J]. Grassland Science, 2010, 56(1):51-55.

[23]
WANG Y, HE L W, XING Y Q, et al. Bacterial diversity and fermentation quality of Moringa oleifera leaves silage prepared with lactic acid bacteria inoculants and stored at different temperatures[J]. Bioresource Technology, 2019, 284:349-358.

[24]
LI J J, LI Z, SHANG S L, et al. Effect of additives and moisture on the fermentation quality and bacterial community of high moisture ear corn[J]. Frontiers in Microbiology, 2023, 14:1251946.

[25]
MCGARVEY J A, FRANCO R B, PALUMBO J D, et al. Bacterial population dynamics during the ensiling of Medicago sativa (alfalfa) and subsequent exposure to air[J]. Journal of Applied Microbiology, 2013, 114(6):1661-1670.

[26]
ZHANG Q, YU Z, WANG X G, et al. Effects of inoculants and environmental temperature on fermentation quality and bacterial diversity of alfalfa silage[J]. Animal Science Journal, 2018, 89(8):1085-1092.

[27]
MUCK R E. Silage microbiology and its control through additives[J]. Revista Brasileira de Zootecnia, 2010, 39(Suppl.spe):183-191.

[28]
COLLINS M D, SAMELIS J, METAXOPOULOS J, et al. Taxonomic studies on some leuconostoc-like organisms from fermented sausages:description of a new genus Weissella for the Leuconostoc paramesenteroides group of species[J]. Journal of Applied Bacteriology, 1993, 75(6):595-603.

[29]
GUO X, ZHOU H, YU Z, et al. Changes in the distribution of nitrogen and plant enzymatic activity during ensilage of lucerne treated with different additives[J]. Grass and Forage Science, 2007, 62(1):35-43.

[30]
TERÁN L C, COEURET G, RAYA R, et al. Phylogenomic analysis of Lactobacillus curvatus reveals two lineages distinguished by genes for fermenting plant-derived carbohydrates[J]. Genome Biology and Evolution, 2018, 10(6):1516-1525.

[31]
XU D M, WANG N, RINNE M, et al. The bacterial community and metabolome dynamics and their interactions modulate fermentation process of whole crop corn silage prepared with or without inoculants[J]. Microbial Biotechnology, 2021, 14(2):561-576.

[32]
XU D M, DING Z T, WANG M S, et al. Characterization of the microbial community,metabolome and biotransformation of phenolic compounds of sainfoin (Onobrychis viciifolia) silage ensiled with or without inoculation of Lactobacillus plantarum[J]. Bioresource Technology, 2020, 316:123910.

[33]
VALAN ARASU M, JUNG M W, ILAVENIL S, et al. Isolation and characterization of antifungal compound from Lactobacillus plantarum KCC-10 from forage silage with potential beneficial properties[J]. Journal of Applied Microbiology, 2013, 115(5):1172-1185.

[34]
BROBERG A, JACOBSSON K, STRÖM K, et al. Metabolite profiles of lactic acid bacteria in grass silage[J]. Applied and Environmental Microbiology, 2007, 73(17):5547-5552.

[35]
GUO X S, KE W C, DING W R, et al. Profiling of metabolome and bacterial community dynamics in ensiled Medicago sativa inoculated without or with Lactobacillus plantarum or Lactobacillus buchneri[J]. Scientific Reports, 2018, 8(1):357.

文章导航

/