研究论文

卵形拟杆菌新菌株的鉴定及其早期干预对哺乳仔猪肠道功能和结肠微生物区系的影响

  • 邓晓烽 , 1 ,
  • 张一帆 1, * ,
  • 刘燕娇 1 ,
  • 郑立康 1 ,
  • EDWARD Liam Good 2 ,
  • 伍爱民 1 ,
  • 李华 1 ,
  • 兰聪 1 ,
  • 何军 1 ,
  • 余冰 1 ,
  • 毛湘冰 1 ,
  • 汤加勇 1 ,
  • 张睿楠 1 ,
  • 虞洁 1 ,
  • 郑萍 1 ,
  • 罗钧秋 1 ,
  • 阎辉 1 ,
  • 王慧芬 1 ,
  • 王曲圆 1 ,
  • 罗玉衡 , 1, **
展开
  • 1 四川农业大学动物营养研究所, 农业农村部动物抗病营养与饲料重点实验室,动物抗病营养教育部、四川省重点实验室,动物营养与饲料工程四川省高校重点实验室,动物抗病营养生物技术教育部工程研究中心, 成都 611130
  • 2 英国伦敦皇家兽医学院病理生物学与种群科学系, 伦敦 NW1 0TU, 英国
** 罗玉衡,教授,博士生导师,E-mail:

* 同等贡献作者

邓晓烽(2002—),男,四川内江人,硕士研究生,动物营养与饲料科学专业。E-mail:

Office editor: 武海龙

收稿日期: 2026-01-17

  网络出版日期: 2026-09-12

基金资助

四川省重大专项(2021ZDZX0009)

国家自然科学基金(32372900)

四川省自然科学基金(2023NSFSC0237)

Identification of a Novel Bacteroides ovatus Strain and Effects of Its Early Intervention on Intestinal Function and Colonic Microbiota of Suckling Piglets

  • DENG Xiaofeng , 1 ,
  • ZHANG Yifan 1 ,
  • LIU Yanjiao 1 ,
  • ZHENG Likang 1 ,
  • EDWARD Liam Good 2 ,
  • WU Aimin 1 ,
  • LI Hua 1 ,
  • LAN Cong 1 ,
  • HE Jun 1 ,
  • YU Bing 1 ,
  • MAO Xiangbing 1 ,
  • TANG Jiayong 1 ,
  • ZHANG Ruinan 1 ,
  • YU Jie 1 ,
  • ZHENG Ping 1 ,
  • LUO Junqiu 1 ,
  • YAN Hui 1 ,
  • WANG Huifen 1 ,
  • WANG Quyuan 1 ,
  • LUO Yuheng , 1, **
Expand
  • 1 Animal Disease-Resistance Nutrition Biotechnology Engineering Research Center of the Ministry of Education, Key Laboratory of Animal Nutrition and Feed Engineering in Sichuan Province, Key Laboratory of Animal Disease-Resistance of Ministry of Education and Sichuan Province, Key Laboratory of Animal Disease-Resistance Nutrition and Feed of Ministry of Agriculture and Rural Affairs, Animal Nutrition Institute, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Pathobiology and Population Sciences Department, Royal Veterinary College, London NW1 0TU, Britain
** professor, E-mail:

* Contributed equally

Received date: 2026-01-17

  Online published: 2026-09-12

摘要

本研究通过对从健康断奶仔猪肠道中分离的卵形拟杆菌(Bacteroides ovatus)LYH6菌株(以下简称LYH6)进行表型、生理生化和遗传学鉴定,并通过动物试验探究该菌株的早期干预对哺乳仔猪肠道功能和结肠微生物区系的影响。首先,对LYH6进行16S rDNA测序鉴定以及形态学鉴定(扫描电镜)、生理生化(革兰氏染色、芽孢染色、氧化酶活性、过氧化氢酶试验、明胶液化试验、溶血试验)特性鉴定和抗生素抗性检测;其次,选择12头7日龄杜洛克×长白×约克(DLY)雄性哺乳仔猪,随机分为2组,每组6个重复,每个重复1头仔猪。对照组(C组)仔猪饲喂基础人工乳,试验组(B组)仔猪第1~10天隔天在人工乳中添加LYH6活菌(1×10⁹ CFU/头)。试验期13 d。结果表明:1)LYH6为一株革兰氏阴性杆菌,不具运动能力,过氧化氢酶试验、明胶液化试验均为阴性,不溶血,对多黏菌素B等11种抗生素表现为耐药。2)与C组相比,B组F/G有降低趋势(P=0.056),血液单核细胞数量显著上升(P<0.05),血液平均红细胞血红蛋白浓度显著降低(P<0.05),血液淋巴细胞数量有降低趋势(P=0.057),血清丙二醛含量显著降低(P<0.05),血清谷胱甘肽过氧化物酶活性显著升高(P<0.05),结肠杯状细胞数量显著增加(P<0.05),空肠绒隐比有升高趋势(P=0.057),空肠中紧密连接蛋白1(TJP1)及回肠中TJP1、闭合蛋白(OCLN)的mRNA相对表达量显著升高(P<0.05),肠系膜淋巴结中白细胞介素-10(IL-10)的mRNA相对表达量显著升高(P<0.05)。3)C组和B组之间结肠微生物α-多样性指数均无显著差异(P>0.05)。B组结肠主要富集梭菌纲(Clostridia)、克里斯滕森菌科(Christensenellaceae)、苏黎世杆菌属(Turicibacter)和产丁酸肠单胞菌(Intestinimonas butyriciproducens)。由此可见,LYH6早期干预可通过增强肠屏障功能、调节免疫、缓解炎症并改善哺乳仔猪的生长和肠道健康,提示其具有益生潜力。

本文引用格式

邓晓烽 , 张一帆 , 刘燕娇 , 郑立康 , EDWARD Liam Good , 伍爱民 , 李华 , 兰聪 , 何军 , 余冰 , 毛湘冰 , 汤加勇 , 张睿楠 , 虞洁 , 郑萍 , 罗钧秋 , 阎辉 , 王慧芬 , 王曲圆 , 罗玉衡 . 卵形拟杆菌新菌株的鉴定及其早期干预对哺乳仔猪肠道功能和结肠微生物区系的影响[J]. 动物营养学报, 2026 , 38(9) : 6551 -6564 . DOI: 10.12418/CJAN2026.525

Abstract

This study aimed to characterize the Bacteroides ovatus LYH6 strain (hereafter referred to as LYH6), which was isolated from the intestinal tract of healthy weaned piglets, through phenotypic, physiological, biochemical and genetic identification, and to investigate the effects of early intervention with this strain on the intestinal function and colonic microbiota of suckling piglets in an animal trial. First, LYH6 was identified by 16S rDNA sequencing, along with morphological characterization (scanning electron microscopy) and physiological and biochemical characterization (Gram staining, spore staining, oxidase activity, catalase test, gelatin liquefaction test and hemolysis test), as well as antibiotic resistance testing. Subsequently, twelve 7-day-old Duroc×Landrace×Yorkshire (DLY) male suckling piglets were selected and randomly divided into 2 groups with 6 replicates per group and 1 piglet per replicate. Piglets in the control group (group C) were fed a basic artificial milk, and others in the test group (group B) were fed the basic artificial milk supplemented with LYH6 live bacteria (1×10⁹ CFU/piglet) every other day during days 1 to 10. The experimental period lasted for 13 days. The results showed as follows: 1) LYH6 was a Gram-negative bacteria, non-motile, negative for the catalase test and gelatin liquefaction test, non-hemolytic, and resistant to 11 antibiotics including polymyxin B. 2) Compared with group C, the feed to gain ratio of group B was tended to decrease (P=0.056), the blood monocytes number was significantly increased (P<0.05), the blood mean corpuscular hemoglobin concentration was significantly decreased (P<0.05), the blood lymphocyte number was tended to decrease (P=0.057), the serum malondialdehyde content was significantly decreased (P<0.05), the serum glutathione peroxidase activity was significantly increased (P<0.05), the colonic goblet cells number was significantly increased (P<0.05), the jejunal villus height to crypt depth ratio was tended to increase (P=0.057), the mRNA relative expression levels of tight junctional protein 1 (TJP1) in jejunum and TJP1, occludin (OCLN) in ileum were significantly increased (P<0.05), and the mRNA relative expression level of interleukin-10 (IL-10) in mesenteric lymph nodes was significantly increased (P<0.05). 3) The α-diversity indices of colonic microbiota between group C and group B had no significant difference (P>0.05). The colon mainly enriched Clostridia, Christensenellaceae, Turicibacter and Intestinimonas butyriciproducens of group B. In conclusion, the early intervention with LYH6 can improve the growth and intestinal health of suckling piglets by enhancing intestinal barrier function, regulating immunity and alleviating inflammation, suggesting that LYH6 has probiotic potential.

仔猪腹泻是全球范围内动物福利、食品安全和生产效益的重大挑战,往往造成死亡率增加、生长发育迟缓、饲料报酬下降、形成僵猪的可能性变高等问题,给养猪业带来巨大经济损失[1-3]。抗生素一度被认为是抗腹泻和细菌感染的最佳生长促进剂,但大量研究表明,抗生素的使用会导致细菌抗药性基因的选择性传播[4-5],寻求安全有效的肠道健康管理策略已成为畜牧业的紧迫挑战[1]。在所有营养调控措施中,益生菌被认为具有较大应用潜力。一代益生菌(first-generation probiotics,FGP)如乳杆菌属(Lactobacillus)[6]、双歧杆菌属(Bifidobacterium)[7]等已被证实具有促进生长、抵抗疾病、降低仔猪腹泻率等益生作用,虽然相关研究较多,但结果缺乏一致性。相较于FGP,下一代益生菌(next-generation probiotics,NGP)是指来自于动物肠道且能够作为药物治疗宿主疾病的微生物[8]。因此,肠道共生菌是NGP的主要来源。
拟杆菌属(Bacteroides)是人和猪肠道中的优势菌属,其中一些物种已在治疗炎症性肠病(inflammatory bowel disease,IBD)、抑郁症、肥胖、大肠癌(colorectal cancer,CRC)等疾病中发挥作用[9]。然而,Bacteroides成员众多,究竟哪些物种具有益生潜力仍待探明。本课题组前期研究发现,灌胃人源多形拟杆菌(Bacteroides thetaiotaomicron,B. thetaiotaomicron)能够有效缓解由环境应激引起的仔猪腹泻[10]。值得注意的是,益生菌的使用应尽量遵循“宿主一致性原则”,因为非本体动物来源的细菌可能具有较差的肠道适应性[11]。与B. thetaiotaomicron相比,卵形拟杆菌(Bacteroides ovatus,B. ovatus)虽研究较少,但有限的研究结果表明其可能促进宿主免疫功能[12-14]。本课题组之前的研究表明,Bacteroides相对丰度减少及代谢功能紊乱与仔猪腹泻存在显著相关[15],且仔猪肠道Bacteroides相对丰度在断奶后急剧下降[16],暗示在断奶前后补充Bacteroides物种可能有助于维持仔猪肠道微生态平衡。此外,在人类婴儿和模式动物上的研究结果表明,益生菌早期干预通常能获得更理想的临床效果[17-18]。因此,本研究以哺乳仔猪为对象,通过人工乳添加猪源Bacteroides菌株,评估其是否具有成为NGP的开发潜力,从而为生猪养殖的“减抗”“替抗”策略提供参考。

1 材料与方法

1.1 伦理声明

本研究遵循我国国务院制定的《实验动物饲养管理条例》(2017年修订版)的相关规定开展,实验方案已获四川农业大学动物护理与使用委员会批准(批准号:SYXK-川-2014-184)。

1.2 试验材料

B. ovatus LYH6(以下简称LYH6)活菌(由本课题组分离和保藏)。

1.3 菌株分离与纯化

选取四川省雅安市某商业养猪场的18日龄健康的杜洛克×长白×约克(DLY)仔猪10头。无菌采集每头仔猪新鲜直肠内容物,用无菌甘油隔绝氧气,并立即置于厌氧袋中运送至实验室。在厌氧培养工作站中将10头猪的粪样混匀,取0.2 g重悬于10 mL无氧磷酸盐缓冲液(PBS),10倍梯度稀释。从10-1~10-7稀释度各取100 μL涂布于脑心浸出液(brain heart infusion,BHI)固体培养基(青岛海博生物技术有限公司),37 ℃厌氧培养48~72 h。培养结束后,挑取单菌落,通过反复划线接种于BHI固体培养基进行纯化。

1.4 菌株的遗传学和表型鉴定

取纯化菌液,采用十六烷基三甲基溴化铵(CTAB)法提取DNA,扩增16S rDNA基因(引物27F/1492R)。PCR体系10 μL:上、下游引物各0.5 μL,模板DNA 1 μL,2×Taq plus Buffer 5 μL,ddH2O 3 μL。程序:94 ℃预变性5 min;94 ℃ 30 s,55 ℃ 30 s,72 ℃ 1 min(30循环);72 ℃延伸5 min。产物测序(上海生工生物工程技术服务有限公司)后于NCBI进行BLAST比对,同源性>98.65%判为同一菌种[10]
复苏冻存菌株(BHI培养基,37 ℃,48 h),取纯化菌体进行扫描电镜(成都赛尔维斯科技有限公司)观察。革兰氏染色、酶(氧化酶、过氧化氢酶、触酶)活性、芽孢染色、运动性及溶血性等表型鉴定参照文献[19]进行。

1.5 菌株的药物敏感性试验

采用纸片扩散法评估菌株对β-内酰胺类(氨苄西林、阿莫西林、青霉素G、头孢吡肟、亚胺培南)、氨基糖苷类(链霉素、庆大霉素)、四环素类(四环素)、林可酰胺类(克林霉素、克拉霉素)、多肽类(万古霉素、多黏菌素)、喹诺酮类(恩诺沙星)、利福霉素类(利福平)、磺胺类(磺胺嘧啶)及恶唑烷酮类(利奈唑胺)共16种抗生素的敏感性。
将对数生长期菌液浓度调至107 CFU/mL,均匀涂布于BHI琼脂平板,贴附药敏片(每药3个重复),置于厌氧产气袋中37 ℃培养48~72 h,测量抑菌圈直径,参照药敏片说明书判定敏感性。

1.6 动物试验

1.6.1 试验设计

选择7日龄DLY雄性哺乳仔猪12头,预饲喂3 d后,按体重相近原则随机分为2组,每组6个重复,每个重复1头仔猪。对照组(C组)仔猪饲喂基础人工乳,不进行任何额外处理;试验组(B组)仔猪第1~10天隔天在人工乳中添加LYH6活菌(1×10⁹ CFU/头),第11~13天停止添加。试验期13 d。人工乳参照NRC(2012)猪营养需要配制,详细配方参照本课题组前期报道[20]。饲喂前按照人工乳∶水=1∶4的比例加入40 ℃温开水中充分溶解,饲喂过程中用水浴保持恒温。

1.6.2 饲养管理

动物试验在四川农业大学动物营养研究所科研基地进行。采用哺乳仔猪专用代谢笼饲养,每个栏位饲养1头仔猪。试验前对圈舍进行全面消毒,试验期间室温控制在28~30 ℃,相对湿度控制在50%~60%。每天饲喂时间分别为06:00、09:00、12:00、15:00、18:00、21:00、24:00,每次以仔猪吃饱为准。每天记录每头猪人工乳摄入量,并计算相应的干物质采食量。

1.6.3 样品采集

试验结束当天早晨,仔猪空腹称重后前腔静脉采血20 mL,其中10 mL抗凝血用于血常规测定;另外10 mL静置30 min后离心(3 000×g,4 ℃,15 min)分离血清,-20 ℃保存用于免疫和抗氧化指标检测。采血后注射戊巴比妥钠(200 mg/kg BW)麻醉,剖腹分离肠道。取结肠内容物5 g于无菌冻存管,-80 ℃保存用于微生物组成分析。取空肠和回肠中段各5 cm,冲洗后刮取肠黏膜;另取肠系膜淋巴结(MLN)5 g,-80 ℃保存用于抗氧化指标和基因表达测定。取十二指肠和空肠段各1 cm,用4%多聚甲醛固定,用于组织形态学检测;取回肠和结肠中段各2 cm,用Carnoy固定液4 ℃保存,用于杯状细胞计数。

1.6.4 测定指标与方法

1.6.4.1 生长性能

试验第1天和试验结束前12 h禁食,06:00空腹称重。试验期间每日准确记录各笼仔猪的人工乳摄入量,计算每头猪全期平均日采食量(ADFI)、平均日增重(ADG)及料重比(F/G)。计算公式如下:
ADFI(g/d)=总采食量/饲养天数;
ADG(g/d)=(末重-初重)/饲养天数;
F/G=ADFI/ADG。

1.6.4.2 腹泻率

每天饲喂时对所有猪只进行腹泻评分,腹泻评分标准如表1所示。腹泻率计算公式如下:
腹泻率(%)=[试验期腹泻仔猪头数/(试验仔猪头数×试验天数)]×100。
表1 腹泻评分标准

Table 1 Standard of diarrhea scoring

项目Items 粪便形状Fecal morphology 腹泻评分Diarrhea score
正常Normal 坚硬的条形或粒状 0
轻度Mild 软便、能成形 1
中度Moderate 浆糊状、不成形 2
重度Severe 液状、粪水分离 3

1.6.4.3 血常规指标

采用血液细胞分析仪(MC-80,迈瑞医疗国际股份有限公司)对抗凝血中白细胞(white blood cell,WBC)、红细胞(red blood cell,RBC)、中性粒细胞(neutrophil,NEU)、单核细胞(monocytes,MON)、淋巴细胞(lymphocyte,LYM)、嗜酸性粒细胞(eosinophil,EOS)、血小板(platelet,PLT)数量等指标进行测定。

1.6.4.4 血清免疫和抗氧化指标

采用酶联免疫吸附法检测血清中细胞因子白细胞介素(IL)-1β、IL-4、IL-6、IL-8、IL-10和肿瘤坏死因子-α(TNF-α)含量(试剂盒购自江苏酶免实业有限公司)以及谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)、超氧化物歧化酶(SOD)活性和丙二醛(MDA)含量、总抗氧化能力(T-AOC)(试剂盒购自南京建成生物工程研究所)。

1.6.4.5 小肠形态结构和杯状细胞数量

十二指肠、空肠组织固定后(4%多聚甲醛,8~24 h),经脱水、透明、石蜡包埋,制备10 μm切片(武汉赛维尔生物科技有限公司),进行苏木精-伊红(HE)染色。光学显微镜(BX43FC,日本奥林巴斯公司)下观察,每张切片选取全部完整绒毛,测量绒毛高度和隐窝深度,计算绒隐比(绒毛高度/隐窝深度)。
回肠、结肠组织固定于Carnoy液7 d后,经无水乙醇脱水、二甲苯透明、石蜡包埋,制备切片,进行阿新蓝-过碘酸雪夫(AB-PAS)染色。每张切片随机选取3个视野,每视野计数3根肠绒毛的杯状细胞数量。

1.6.4.6 空肠、回肠黏膜及MLN中相关基因表达

采用Trizol试剂(日本TaKaRa公司)提取空肠、回肠黏膜及MLN总RNA,采用NanoDrop 2000(美国Thermo Fisher公司)检测浓度和纯度。以HiScript Ⅲ All-in-one RT SuperMix(南京诺唯赞生物科技股份有限公司)将RNA反转录为cDNA。采用荧光定量PCR仪(Quant Studio 5,美国Thermo Fisher公司)进行实时荧光定量PCR(qPCR)扩增,反应体系10 μL:SYBR Premix Ex TaqTM 5 μL(日本TaKaRa公司),上、下游引物各0.4 μL,cDNA 1 μL,ddH2O 3.2 μL。引物序列见表2。以β-肌动蛋白(β-actin)为内参,采用2-ΔΔCt法计算目的基因[TNF-αIL-1βIL-6、IL-10、紧密连接蛋白1(TJP1)、闭合蛋白(OCLN)和密封蛋白1(CLDN1)]mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因Genes 引物序列Primer sequences
β-肌动蛋白β-actin F:TGGAACGGTGAAGGTGACAGC
R:GCTTTTGGGAAGGCAGGGACT
肿瘤坏死因子-α TNF-α F:CGTGAAGCTGAAAGACAACCAG
R:GATGGTGTGAGTGAGGAAAACG
白细胞介素-1β IL-1β F:GTGATGCCAACGTGCAGTCT
R:AGGTGGAGAGCCTTCAGCAT
白细胞介素-6 IL-6 F:GCCTTCTTGGGACTGATGCT
R:TGTGACTCCAGCTTATCTCTTGG
白细胞介素-10 IL-10 F:CGGCGCTGTCATCAATTTCTG
R:CCCCTCTCTTGGAGCTTGCTA
紧密连接蛋白1 TJP1 F:CAGCCCCCGTACATGGAGA
R:GCGCAGACGGTGTTCATAGTT
闭合蛋白OCLN F:TCAGGTGCACCCTCCAGATT
R:AGGAGGTGGACTTTCAAGAGG
密封蛋白1 CLDN1 F:TCTTAGTTGCCACAGCATGG
R:CCAGTGAAGAGAGCCTGACC

1.6.5 16S rRNA扩增子测序和生物信息学分析

结肠食糜DNA使用TIANamp DNA提取试剂盒(DP302,北京天根生化科技有限公司)提取。提取的DNA使用引物341F(5'-CCTAYGGGRBGCASCAG-3')和806R(5'-GGACTACNNGGGTATCTAAT-3')进行扩增,随后进行高通量测序(北京诺禾致源科技股份有限公司)。序列降噪、处理、生物信息学分析和统计方法参照本课题组前期建立的方法[21]进行。

1.7 数据处理与统计分析

数据首先采用Excel 2016进行分类整理,之后用SPSS 24.0和GraphPad Prism 8软件对生长性能、腹泻率、肠道形态、血常规、基因表达量、血清免疫和抗氧化指标等数据进行统计分析与绘图。表格中结果以平均值和均值标准误(SEM)表示,图中以误差线表示数据的变异程度。采用Shapiro-Wilk检验对数据进行正态性检验。组间比较:符合正态分布的数据采用Student’s t检验,不符合正态分布的数据(如腹泻率)采用Mann-Whitney U检验。P<0.05表示差异显著,0.05≤P<0.10表示有升高或降低趋势。

2 结果

2.1 菌株鉴定结果

试验菌株的16S rRNA基因序列与已知B. ovatus JCM 5824菌株序列的相似性最高(98.36%),但由于未达98.65%,因此将该菌株暂命名为LYH6,并基于16S rRNA基因序列构建系统发育树(图1-A)。扫描电镜结果(图1-B图1-C)显示,LYH6呈短杆状,细胞表面粗糙,未观察到菌毛或鞭毛。
图1 LYH6基于16S rDNA序列的进化树图谱和扫描电镜照片

Bacteroides ovatus:卵形拟杆菌;Bacteroides koreensis:韩国拟杆菌;Bacteroides kribbi:克里比拟杆菌;Bacteroides luhongzhouii:卢洪洲拟杆菌;Bacteroides xylanisolvens:解木聚糖拟杆菌;Bacteroides zhangwenhongii:张文宏拟杆菌;Bacteroides finegoldii:细金拟杆菌;Bacteroides thetaiotaomicron:多形拟杆菌;Bacteroides faecis:粪便拟杆菌;Bacteroides faecichinchillae:毛丝鼠粪拟杆菌;Porphyromonas gingivalis:牙龈卟啉单胞菌。

Fig.1 Phylogenetic tree based on 16S rDNA sequence and scanning electron microscope images of LYH6

A:系统发育树;B:扫描电镜照片(5 000×);C:扫描电镜照片(30 000×)。A: phylogenetic tree; B: scanning electron microscope image (5 000×); C: scanning electron microscope image (30 000×).

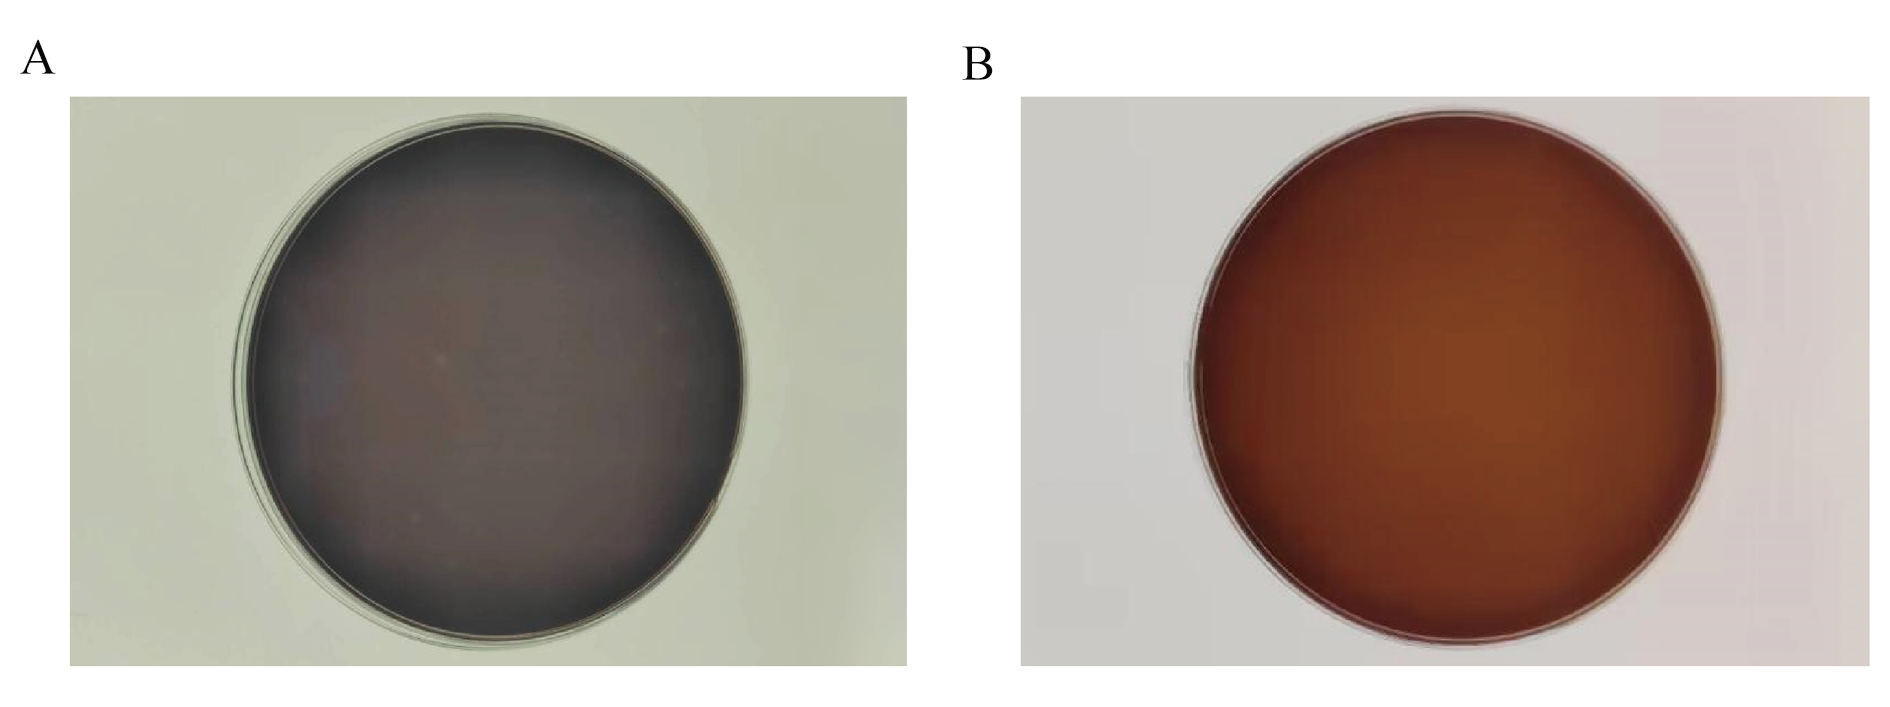
生理生化鉴定结果显示,LYH6为革兰氏阴性菌,氧化酶活性、过氧化氢酶活性及明胶液化试验均为阴性,并且无溶血活性(图2)。在常用的16种抗生素中,LYH6对包括多黏菌素B在内的11种抗生素表现为耐药,而对包括亚胺培南在内的5种抗生素表现为敏感(表3)。
图2 LYH6溶血活性试验结果

A:LYH6血琼脂平板;B:金黄色葡萄球菌β血琼脂平板(溶血阳性对照)。

Fig.2 Hemolytic activity test results of LYH6

A: blood agar plate; B: Staphylococcus aureus β blood agar plate (hemolysis positive control).

表3 抗生素敏感性试验结果

Table 3 Results of antibiotic susceptibility test

抗生素
Antibiotics
效价
Valence/(μg/片)
抑菌圈直径
IZD/mm
抑菌圈直径判断标准
Criteria for determining the diameter of IZD
结果
Result
耐药R 中介I 敏感S
亚胺培南IPM 10 20 ≤13 14~15 ≥16 敏感
氨苄西林SAM 20 21 ≤11 12~14 ≥15 敏感
克拉霉素CLR 15 23 ≤10 11~12 ≥13 敏感
利奈唑胺LZD 30 23 ≤20 21~22 ≥23 敏感
阿莫西林AML 10 23 ≤13 14~16 ≥17 敏感
多黏菌素B PB 300 0 ≥11 耐药
万古霉素VA 30 15 ≥17 耐药
庆大霉素CN 10 10 ≤12 13~14 ≥15 耐药
链霉素S 10 0 ≤11 12~14 ≥15 耐药
克林霉素DA 2 0 ≤14 15~16 ≥17 耐药
利福平RD 5 11 ≤16 17~19 ≥20 耐药
青霉素G P 10 24 ≤28 ≥29 耐药
头孢吡肟FEP 30 0 ≤14 15~17 ≥18 耐药
四环素TE 30 11 ≤11 12~14 ≥15 耐药
磺胺嘧啶SUZ 300 0 ≤12 13~16 ≥17 耐药
恩诺沙星ENR 5 13 ≤15 16~20 ≥21 耐药

2.2 LYH6对哺乳仔猪生长性能的影响

表4所示,2组之间末重、ADG和ADFI无显著差异(P>0.05)。与C组相比,B组F/G有降低趋势(P=0.056),下降了7.5%;B组腹泻率下降了75%,但差异不显著(P>0.05)。
表4 LYH6对哺乳仔猪生长性能的影响

Table 4 Effects of LYH6 on growth performance of suckling piglets

项目
Items
组别Groups SEM P
P-value
C B
始重IBW/kg 2.53 2.47 0.293 0.846
末重FBW/kg 4.99 5.40 0.694 0.571
平均日增重ADG/(g/d) 189.74 225.51 34.770 0.328
平均日采食量ADFI/(g/d) 150.36 165.71 23.880 0.535
料重比F/G 0.80 0.74 0.029 0.056
腹泻率Diarrhea rate/% 10.27 2.56 0.178

同行数据肩标不同小写字母表示差异显著(P<0.05),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

2.3 LYH6对哺乳仔猪血液指标的影响

表5所示,与C组相比,B组血液单核细胞数量显著上升(P<0.05),血液平均红细胞血红蛋白浓度显著降低(P<0.05);B组血液淋巴细胞数量有降低趋势(P=0.057),下降了22.44%。
表5 LYH6对哺乳仔猪血常规指标的影响

Table 5 Effects of LYH6 on blood routine indexes of suckling piglets

项目
Items
组别Groups SEM P
P-value
C B
白细胞数量WBC number/(×109个/L) 14.16 12.91 1.638 0.466
中性粒细胞数量NEU number/(×109个/L) 5.12 5.76 1.830 0.734
淋巴细胞数量LYM number/(×109个/L) 8.60 6.67 0.900 0.057
单核细胞数量MON number/(×109个/L) 0.23b 0.30a 0.030 0.043
嗜酸性粒细胞数量EOS number/(×109个/L) 0.12 0.12 0.047 0.885
嗜碱性粒细胞数量BAS number/(×109个/L) 0.05 0.05 0.022 0.940
中性粒细胞百分比NEU percentage/% 35.67 40.48 10.240 0.650
淋巴细胞百分比LYM percentage/% 61.53 55.74 10.140 0.582
单核细胞百分比MON percentage/% 1.65 2.54 0.509 0.114
嗜酸性粒细胞百分比EOS percentage/% 0.82 0.84 0.286 0.937
嗜碱性粒细胞百分比BAS percentage/% 0.33 0.40 0.139 0.643
红细胞数量RBC number/(×1012个/L) 6.66 6.21 0.355 0.241
血红蛋白HGB/(g/L) 142.33 133.80 5.010 0.123
红细胞压积HCT/% 42.43 41.08 1.506 0.392
平均红细胞体积MCV/fL 63.95 66.24 2.126 0.309
平均红细胞血红蛋白含量MCH/pg 21.43 21.54 0.602 0.863
平均红细胞血红蛋白浓度MCHC/(g/L) 335.00a 322.25b 3.444 0.023
红细胞分布宽度变异系数RDW-CV/% 21.23 21.86 0.638 0.352
红细胞分布宽度标准差RDW-SD/fL 51.20 54.94 2.681 0.196
血小板数量PLT number/(×109个/L) 184.33 136.60 69.200 0.508
平均血小板体积MPV/fL 9.50 10.12 0.872 0.495
血小板分布宽度PDW 16.70 16.34 0.302 0.263
血小板压积PCT/% 0.17 0.15 0.066 0.744
表6所示,与C组相比,B组血清MDA含量显著降低(P<0.05),血清GSH-Px活性显著升高(P<0.05)。2组之间其他血清抗氧化和免疫指标无显著差异(P>0.05)。
表6 LYH6对哺乳仔猪血清抗氧化和免疫指标的影响

Table 6 Effects of LYH6 on serum antioxidant and immune indices of suckling piglets

项目
Items
组别Groups SEM P
P-value
C B
过氧化氢酶CAT/(U/mL) 17.27 16.65 4.527 0.893
丙二醛MDA/(nmol/mL) 8.82a 7.62b 0.244 <0.001
超氧化物歧化酶SOD/(U/mL) 153.50 154.30 4.498 0.865
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 255.50b 312.10a 19.630 0.016
总抗氧化能力T-AOC/(U/mL) 2.55 2.35 0.288 0.498
肿瘤坏死因子-α TNF-α/(ng/L) 289.60 276.10 19.340 0.502
白细胞介素-1β IL-1β/(ng/L) 31.31 30.69 1.013 0.553
白细胞介素-4 IL-4/(ng/L) 43.96 42.42 5.982 0.802
白细胞介素-6 IL-6/(ng/L) 507.50 542.90 54.220 0.529
白细胞介素-8 IL-8/(ng/L) 321.80 336.20 19.280 0.472
白细胞介素-10 IL-10/(ng/L) 332.30 279.70 49.800 0.316

2.4 LYH6对哺乳仔猪肠道形态和杯状细胞数量的影响

表7所示,与C组相比,B组结肠杯状细胞数量显著增加(P<0.05);B组空肠绒隐比有升高趋势(P=0.057),上升了16.97%。
表7 LYH6对哺乳仔猪肠道形态和杯状细胞数量的影响

Table 7 Effects of LYH6 on intestinal morphology and goblet cell counts of suckling piglets

项目
Item
组别Groups SEM P
P-value
C B
肠道形态Intestinal morphology
十二指肠Duodenum
绒毛高度Villus height/μm 494.82 537.01 59.660 0.496
隐窝深度Crypt depth/μm 203.68 221.83 15.950 0.282
绒隐比V/C 2.53 2.58 0.242 0.837
空肠Jejunum
绒毛高度Villus height/μm 397.92 441.69 28.620 0.157
隐窝深度Crypt depth/μm 182.25 174.38 8.187 0.359
绒隐比V/C 2.18 2.55 0.175 0.057
杯状细胞数量Goblet cell count/个
回肠Ileum 41.21 45.24 7.058 0.581
结肠Colon 40.80b 46.13a 2.597 0.010

2.5 LYH6对哺乳仔猪空肠、回肠和MLN中相关基因表达的影响

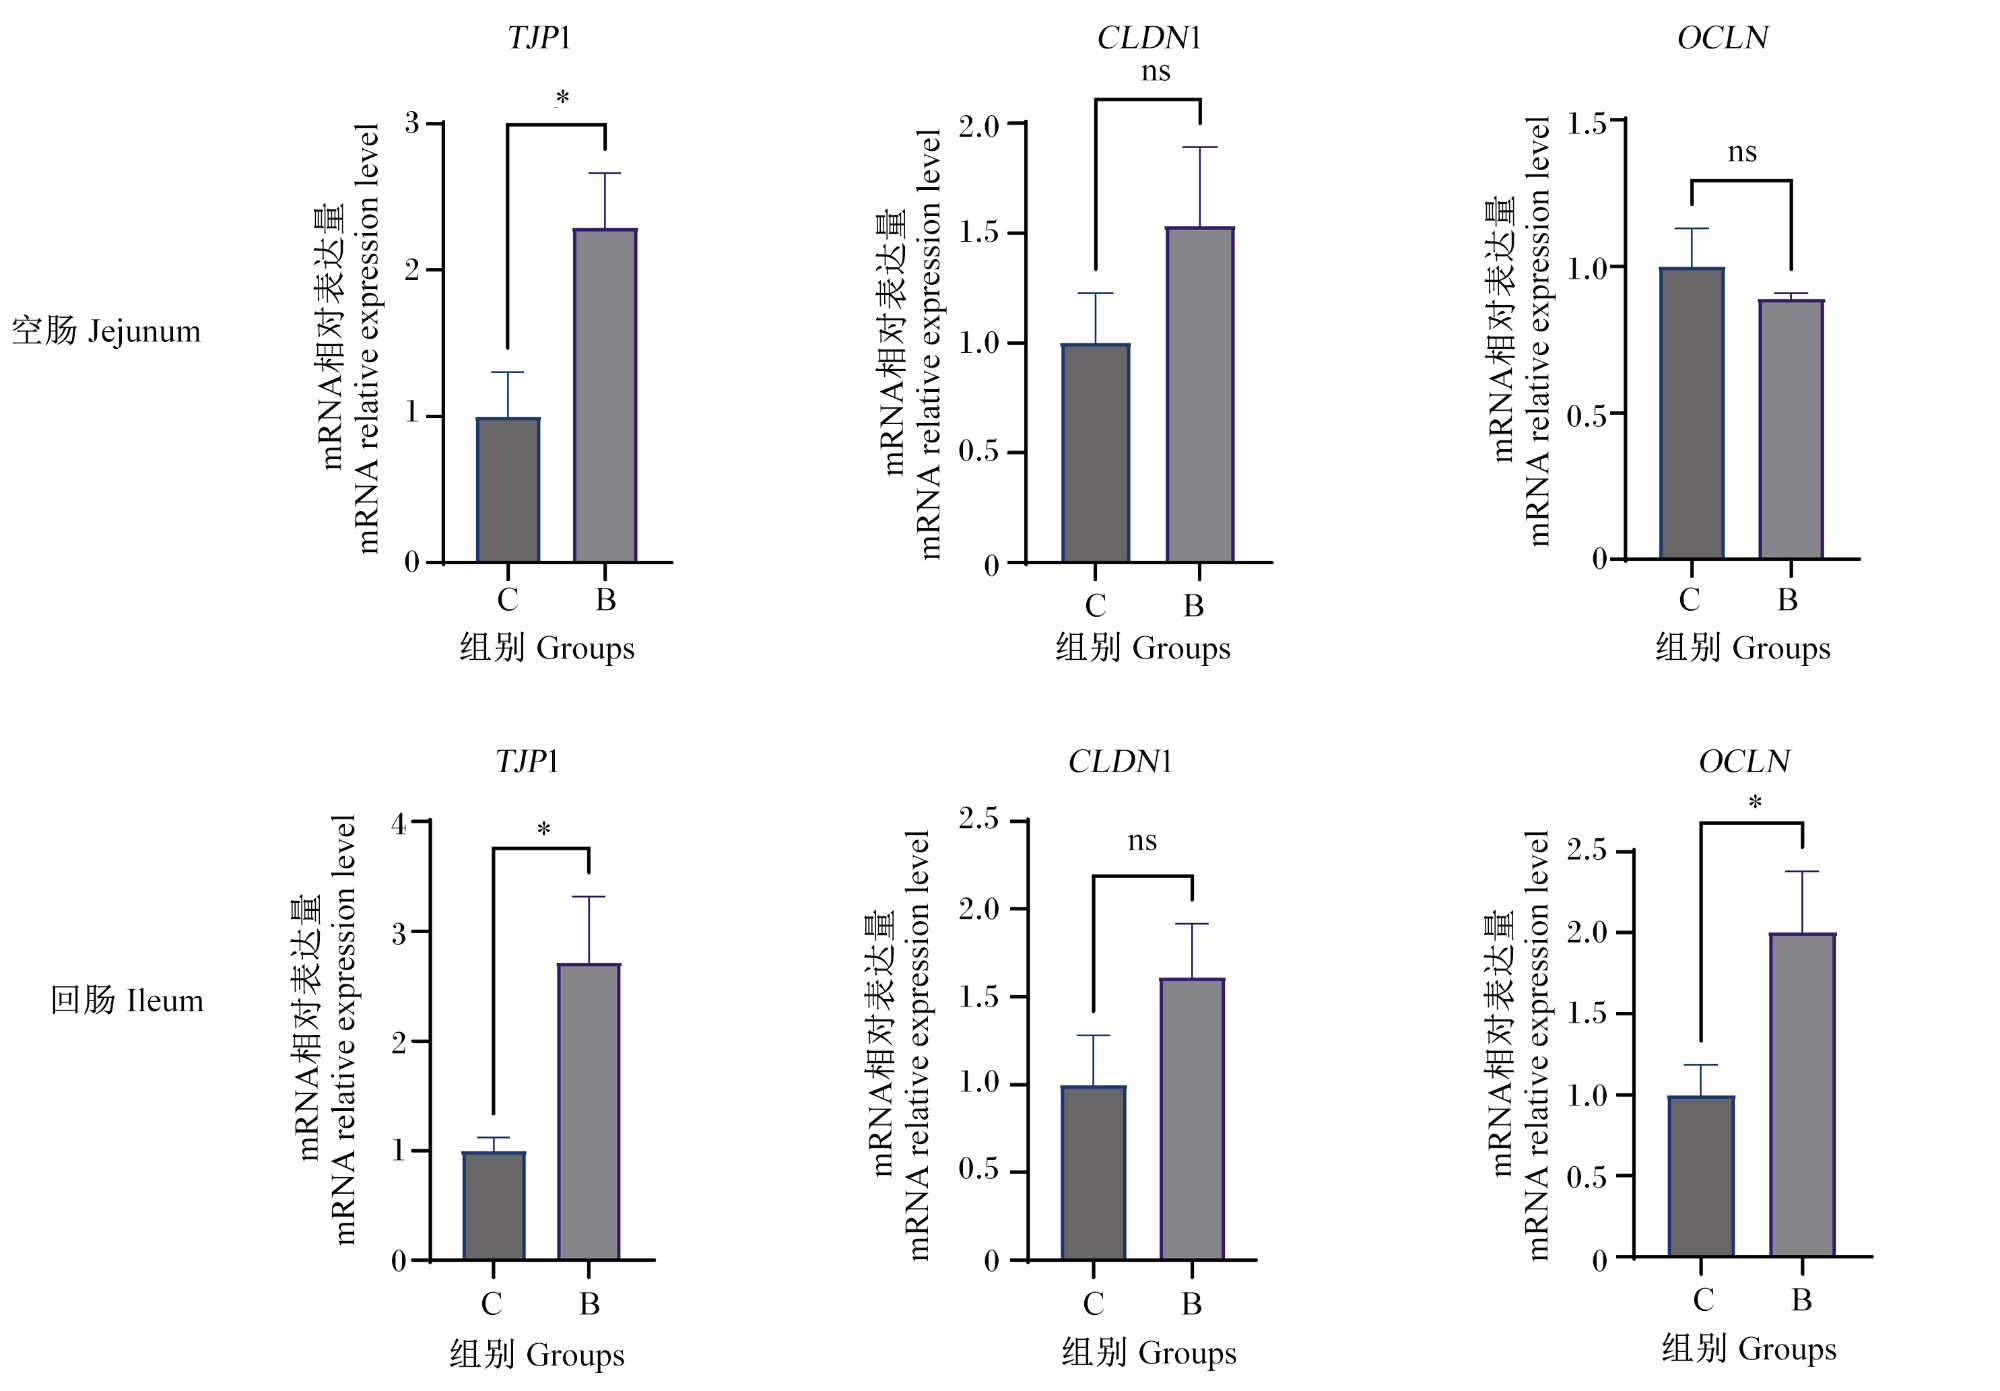
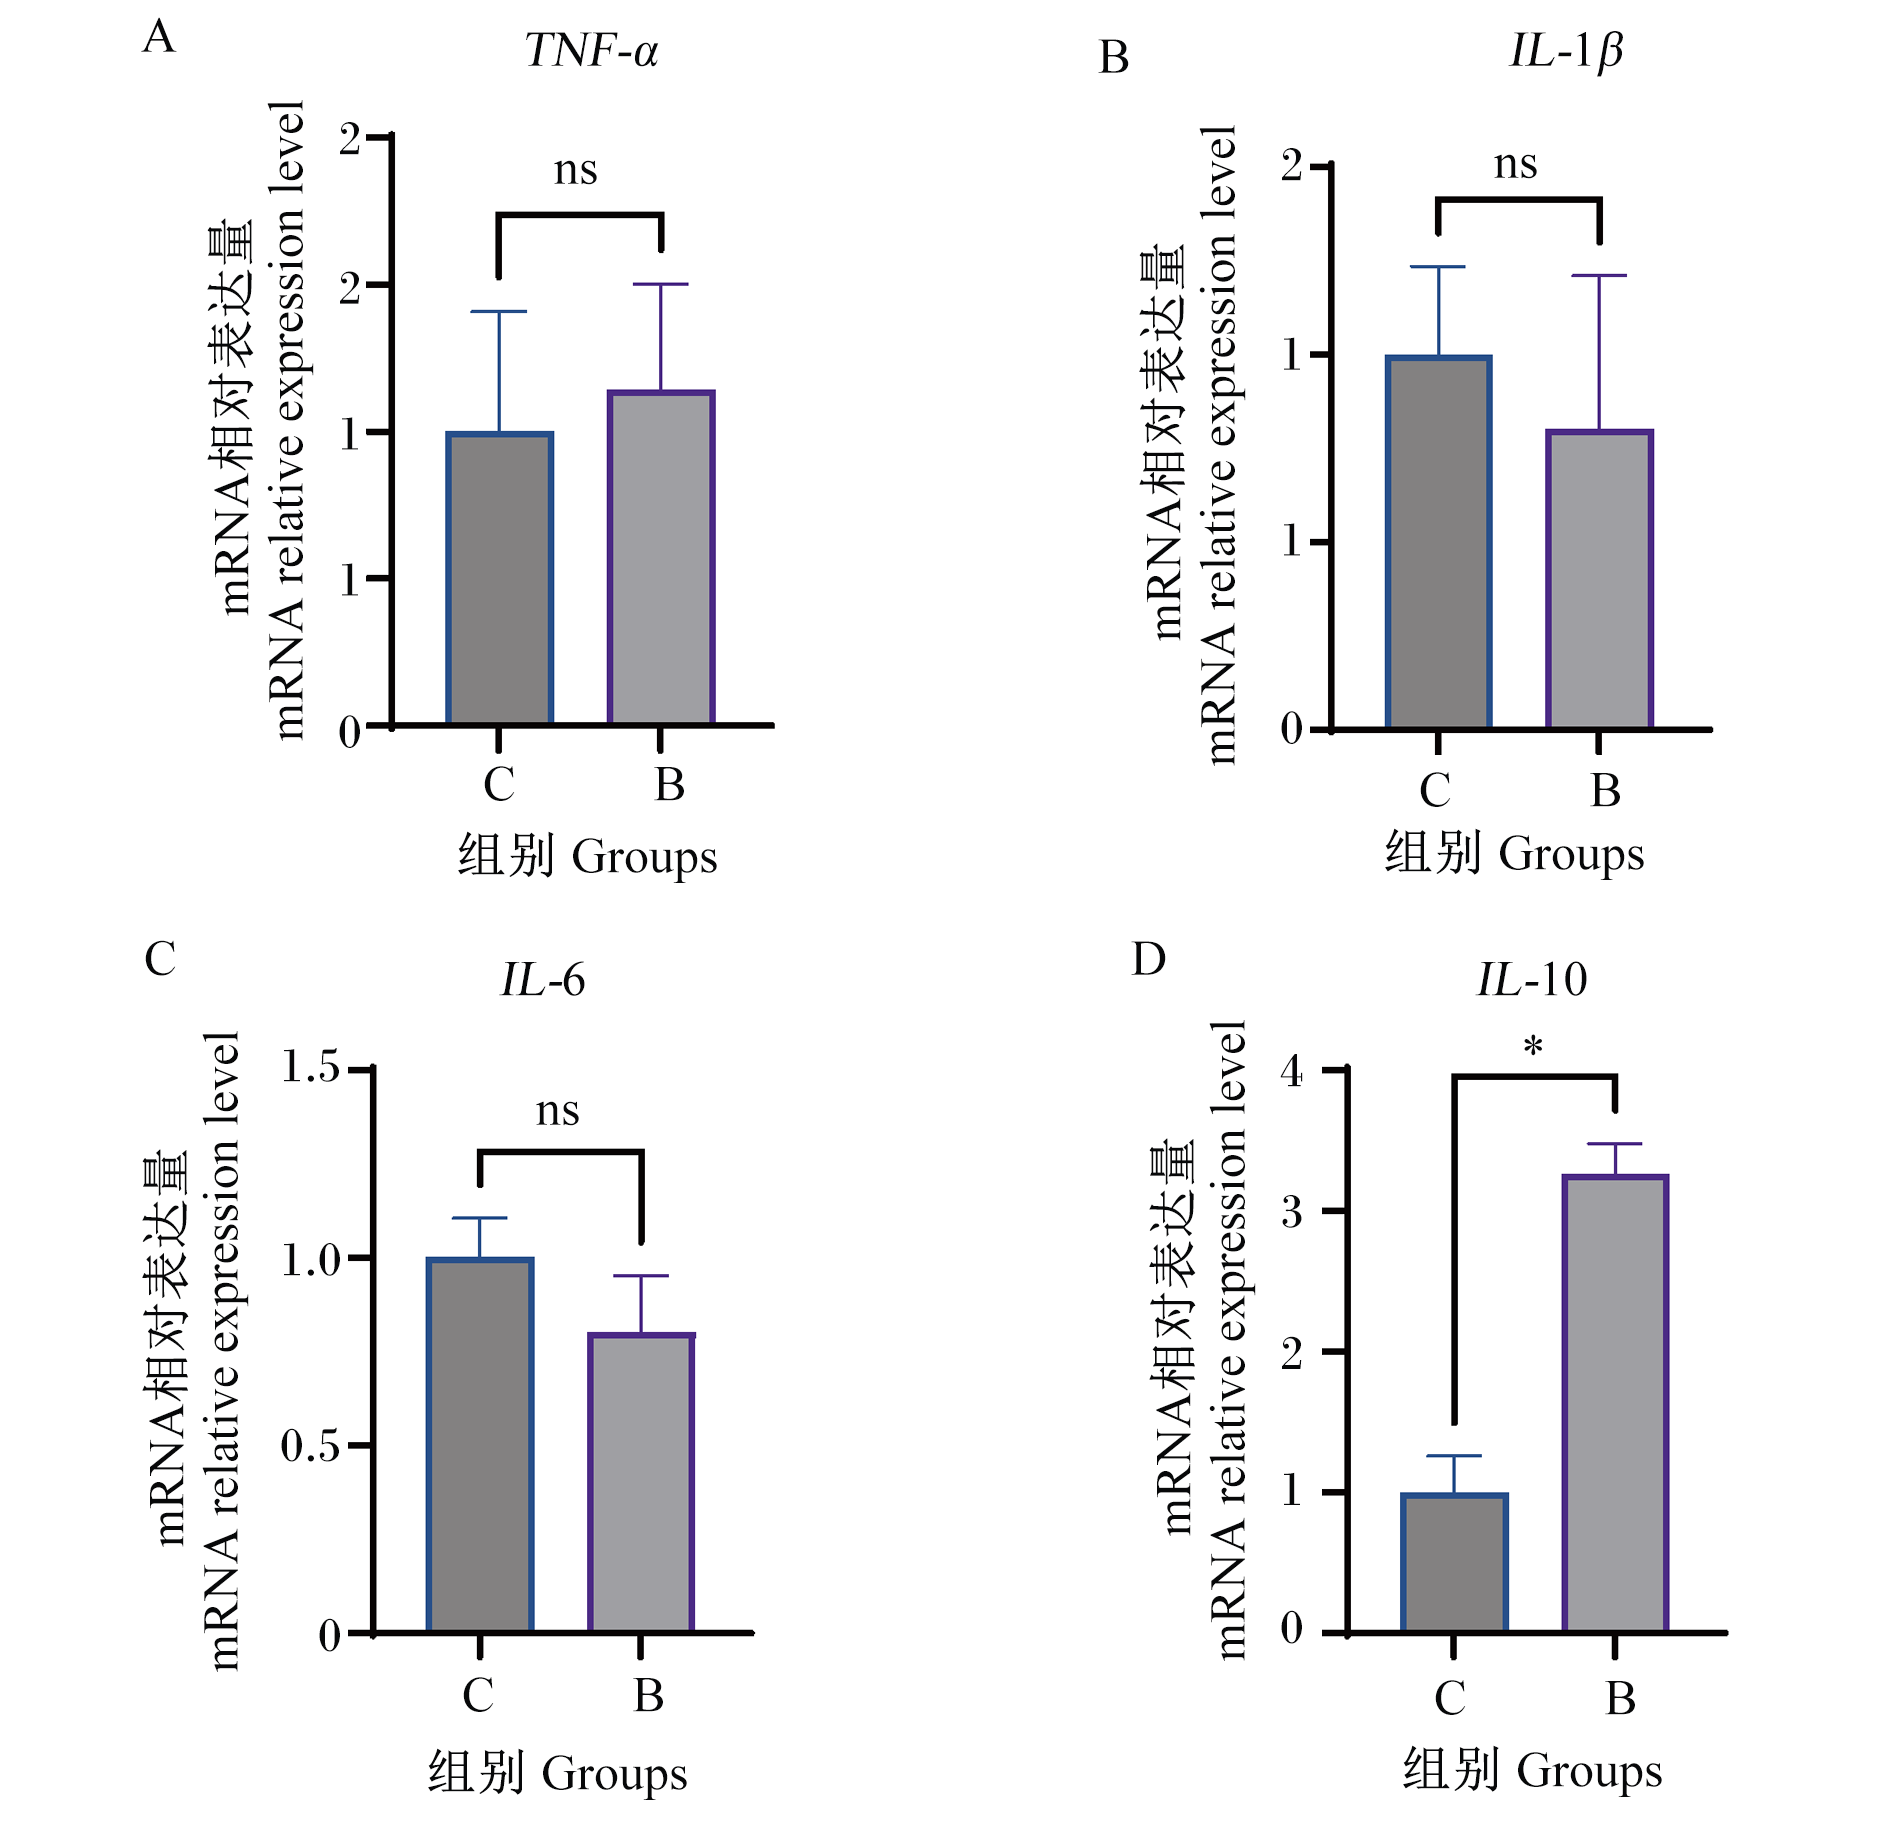
图3图4所示,与C组相比,B组空肠中TJP1及回肠中TJP1、OCLN的mRNA相对表达量显著升高(P<0.05),B组MLN中IL-10的mRNA相对表达量显著升高(P<0.05)。
图3 LYH6对哺乳仔猪肠道屏障相关基因表达的影响

TJP1:紧密连接蛋白1 tight junctional protein 1;OCLN:闭合蛋白 occludin;CLDN1:密封蛋白1 claudin 1。

ns表示无显著差异(P>0.05),*表示差异显著(P<0.05)。下图同。ns indicated no significant difference (P>0.05), * indicated significant difference (P<0.05). The same as below.

Fig.3 Effects of LYH6 on expression of intestinal barrier-related genes of suckling piglets

图4 LYH6对哺乳仔猪MLN中细胞因子基因表达的影响

TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-1β:白细胞介素-1β interleukin-1β;C:IL-6:白细胞介素-6 interleukin-6;D:IL-10:白细胞介素-10 interleukin-10。

Fig.4 Effects of LYH6 on expression of cytokine genes in MLN of suckling piglets

2.6 LYH6对哺乳仔猪结肠食糜微生物组成的影响

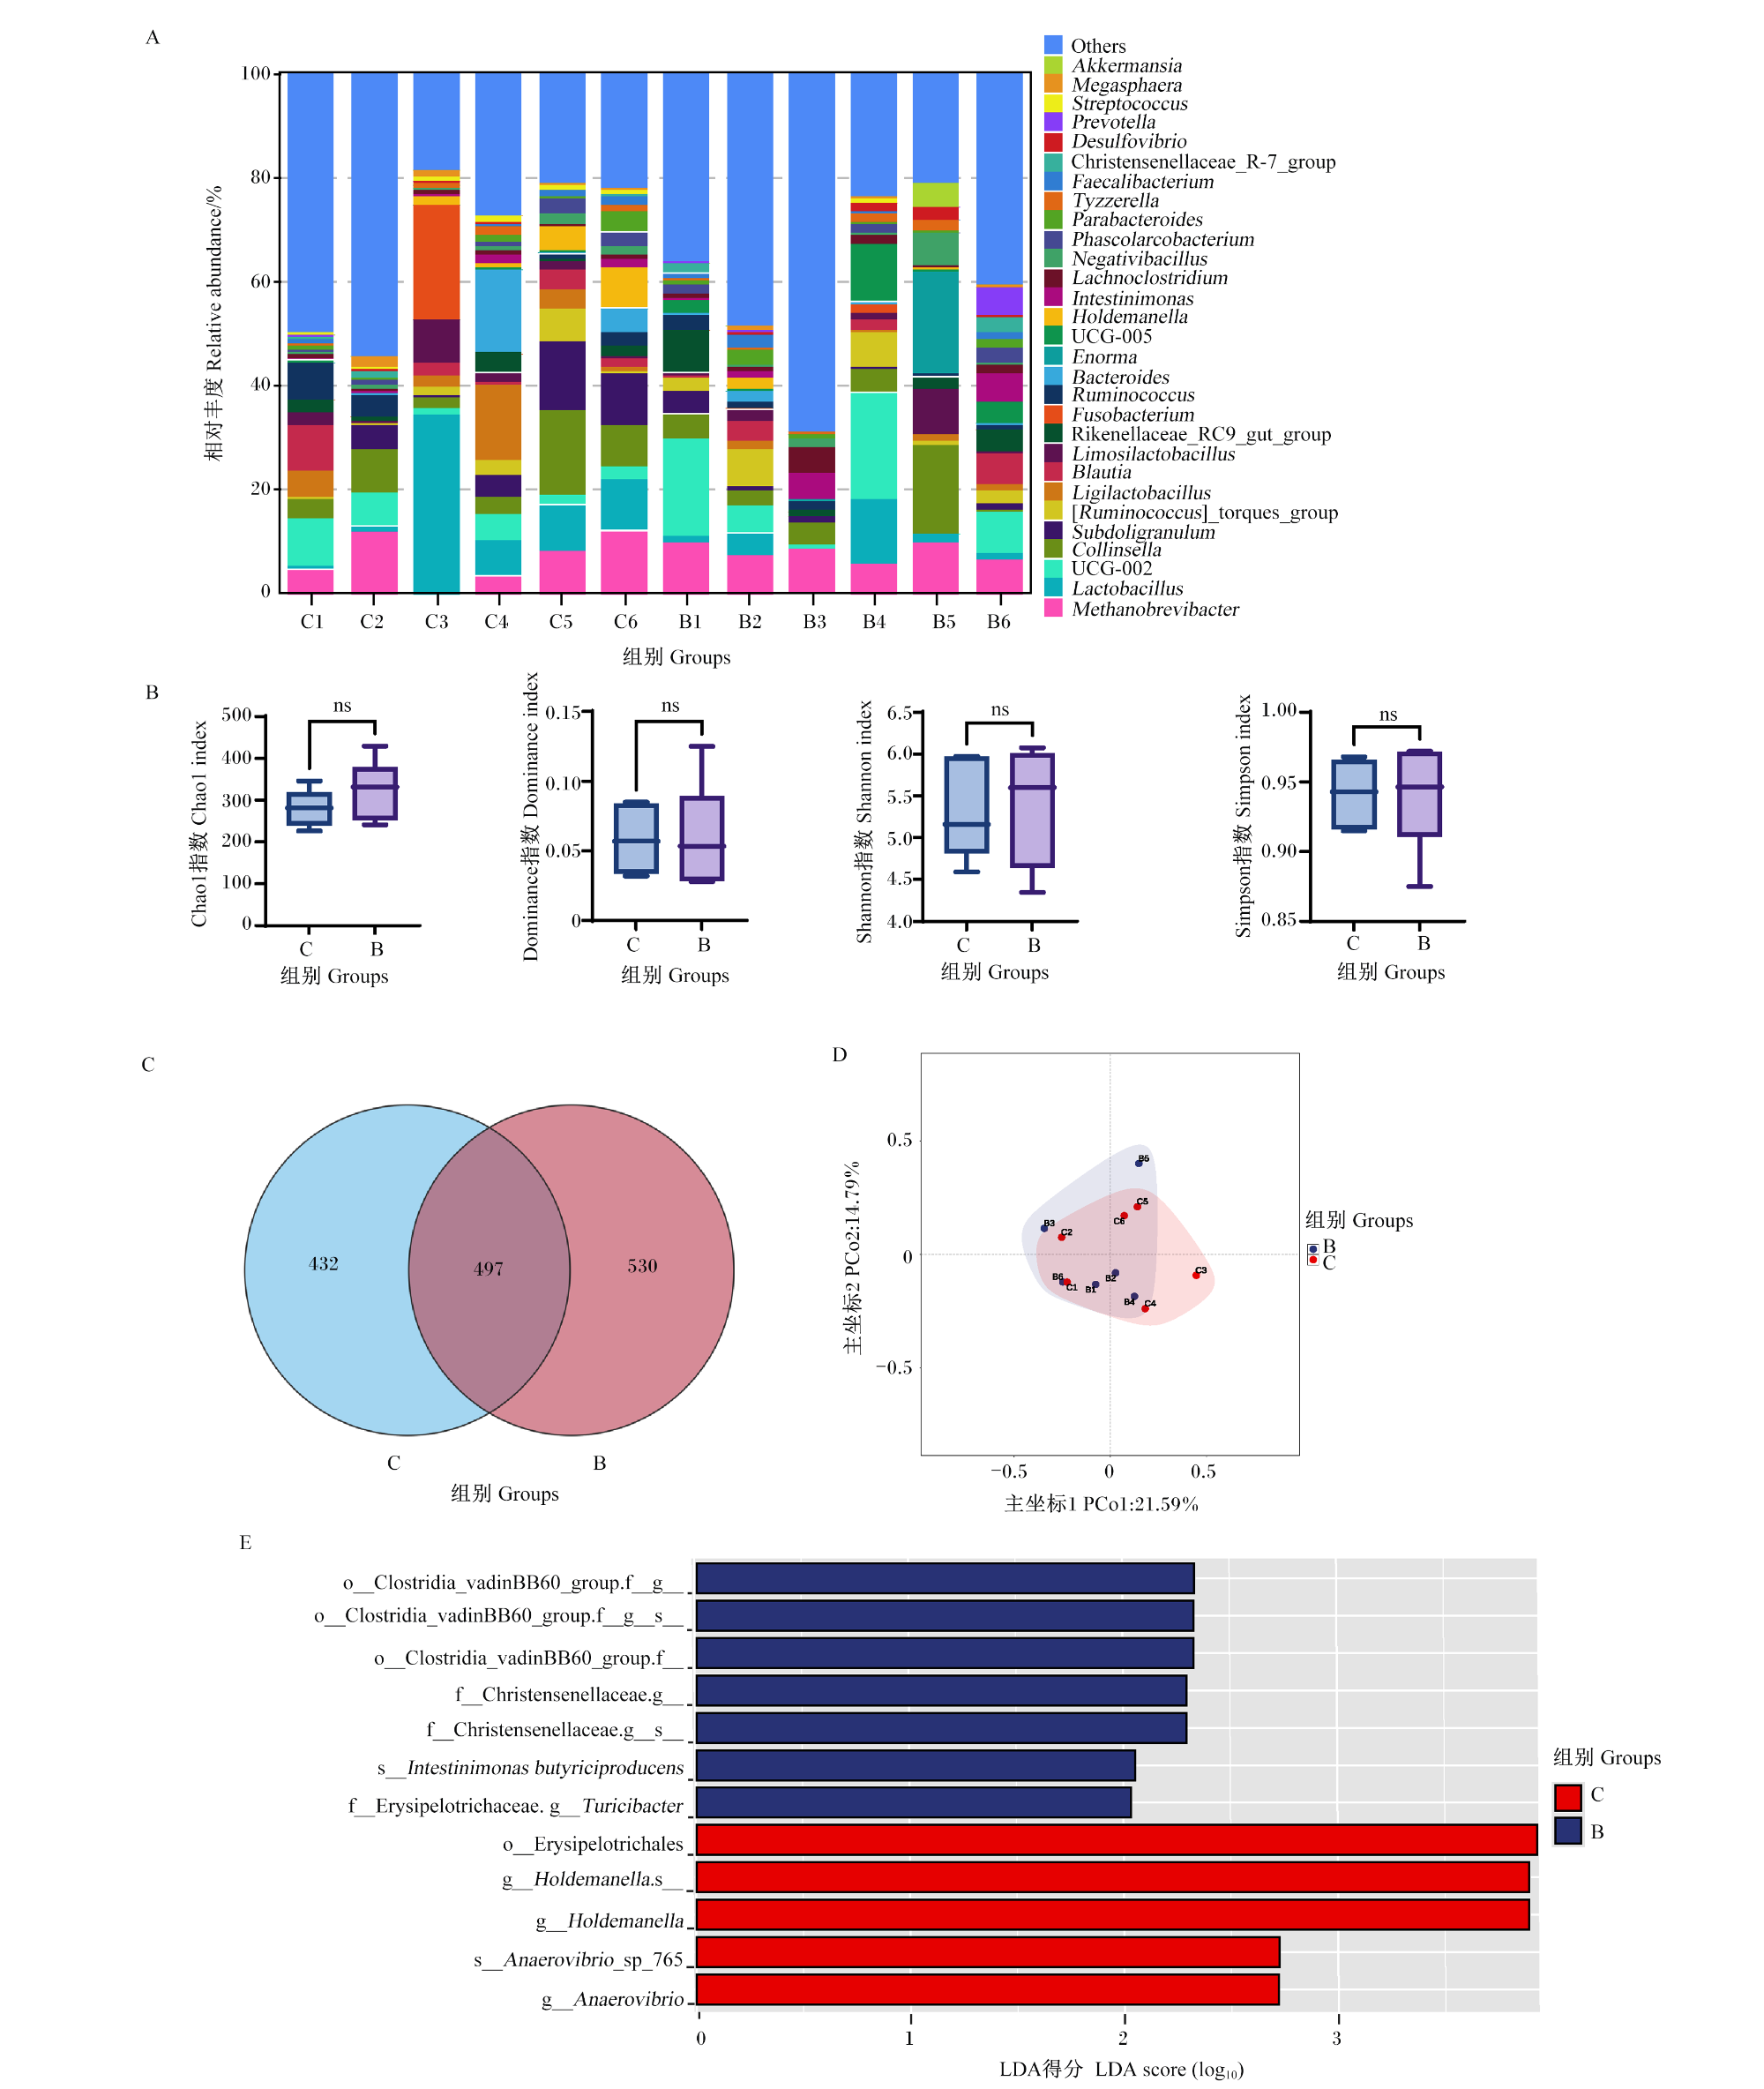
属水平相对丰度堆叠柱状图显示,C组和B组哺乳仔猪结肠均以Lactobacillus、UCG-002、科林斯菌属(Collinsella)、甲烷短杆菌属(Methanobrevibacter)等为主(图5-A)。α-多样性指数分析显示,C组和B组之间哺乳仔猪结肠微生物α-多样性指数均无显著差异(P>0.05,图5-B)。Venn图显示,C组和B组哺乳仔猪结肠微生物共享497个扩增子序列变体(ASVs),其中C组有432个独有ASVs,B组有530个独有ASVs(图5-C)。主坐标分析(principal coordinates analysis,PCoA)显示,C组和B组哺乳仔猪结肠微生物在β-多样性层面呈现一定分离趋势,但仍存在重叠(图5-D)。线性判别分析效应大小(linear discriminant analysis effect size,LEfSe)分析显示,B组哺乳仔猪结肠主要富集梭菌纲(Clostridia)、克里斯滕森菌科(Christensenellaceae)、苏黎世杆菌属(Turicibacter)和产丁酸肠单胞菌(Intestinimonas butyriciproducens),C组哺乳仔猪结肠则主要富集丹毒丝菌目(Erysipelotrichales)、霍尔德曼氏菌属(Holdemanella)和厌氧弧菌属未定种765(Anaerovibrio sp 765)(图5-E)。
图5 LYH6对哺乳仔猪结肠食糜微生物组成的影响

Bacteroides ovatus:卵形拟杆菌;Bacteroides koreensis:韩国拟杆菌;Bacteroides kribbi:克里比拟杆菌;Bacteroides luhongzhouii:卢洪洲拟杆菌;Bacteroides xylanisolvens:解木聚糖拟杆菌;Bacteroides zhangwenhongii:张文宏拟杆菌;Bacteroides finegoldii:细金拟杆菌;Bacteroides thetaiotaomicron:多形拟杆菌;Bacteroides faecis:粪便拟杆菌;Bacteroides faecichinchillae:毛丝鼠粪拟杆菌;Porphyromonas gingivalis:牙龈卟啉单胞菌;Akkermansia:阿克曼菌属;Megasphaera:巨球菌属;Streptococcus:链球菌属;Prevotella:普雷沃氏菌属;Desulfovibrio:脱硫弯菌属;Christensenellaceae_R-7_group:克里斯滕森菌科R-7类群;Faecalibacterium:普拉梭菌属;Tyzzerella:泰泽雷拉菌属;Parabacteroides:副拟杆菌属;Phascolarcobacterium:考拉氏拟杆菌属;Negativibacillus:阴性杆菌属;Lachnoclostridium:毛梭菌属;Intestinimonas:肠单胞菌属;Holdemanella:霍尔德曼氏菌属;Enorma:恩诺玛菌属;Bacteroides:拟杆菌属;Ruminococcus:瘤胃球菌属;Fusobacterium:梭状芽孢杆菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Limosilactobacillus:黏液乳杆菌属;Blautia:布劳特菌属;Ligilactobacillus:联合乳杆菌属;[Ruminococcus]_torques_group:瘤胃球菌属torques组;Subdoligranulum:亚多利格兰菌属;Collinsella:科林斯菌属;Lactobacillus:乳杆菌属;Methanobrevibacter:甲烷短杆菌属;o__Clostridia_vadinBB60_group.f__g__:梭菌纲vadinBB60类群(目;科/属未定);o__Clostridia_vadinBB60_group.f__g__s__:梭菌纲vadinBB60类群(目;科/属/种未定);o__Clostridia_vadinBB60_group.f__:梭菌纲vadinBB60类群(目;科未定);f__Christensenellaceae.g__:克里斯滕森菌科(属未定);f__Christensenellaceae.g__s__:克里斯滕森菌科(属/种未定);s__Intestinimonas butyriciproducens:产丁酸肠单胞菌;f__Erysipelotrichaceae. g__Turicibacter:丹毒丝菌科—苏黎世杆菌属;o__Erysipelotrichales:丹毒丝菌目;g__Holdemanella:霍尔德曼氏菌属;g__Holdemanella.s__:霍尔德曼氏菌属(种未定);g__Anaerovibrio:厌氧弧菌属;s__Anaerovibrio_sp_765:厌氧弧菌属未定种765(Anaerovibrio sp. 765)。

A:属水平相对丰度堆叠柱状图;B:α-多样性指数分析;C:Venn图;D:主坐标分析;E:线性判别分析效应大小分析(线性判别分析得分>2,P<0.05)。A: stacked bar chart of relative abundance at genus level; B: α-diversity indices analysis; C: Venn diagram; D: PCoA; E: LEfSe (LDA score>2, P<0.05).

Fig.5 Effects of LYH6 on colonic digesta microbial composition of suckling piglets

3 讨论

3.1 LYH6的生理生化特性

本研究所用LYH6分离自健康仔猪肠道,天然具备适应猪肠道环境的生理特性,符合“宿主一致性原则”。此外,LYH6无溶血活性及运动能力,而这2种表型通常与细菌致病性相关[22],提示该菌株具备作为益生菌候选株的安全性基础。值得注意的是,LYH6对11种常用抗生素具有耐药性。这一表型需从双重角度加以解读。一方面,微生物对特定抗生素的耐受能力可能反映其对肠道环境(如次级代谢产物、抑菌物质等)的适应性,有研究指出,环境压力下的耐受性是微生物生态适应性的体现[23];另一方面,耐药性若由可移动基因元件介导,则存在向肠道菌群中其他细菌(包括潜在致病菌)水平转移的风险,这对公共健康和生物安全构成潜在威胁[24]。对此,欧洲食品安全局(EFSA)明确规定:应用于动物饲料、食品和人类的益生菌可携带抗生素耐药基因,但这些基因必须不具备转移能力[25]。然而,LYH6所携带的耐药基因是否具有转移风险,尚需通过全基因组测序和接合转移试验进一步验证。

3.2 LYH6早期干预对哺乳仔猪生长和肠道健康的改善作用

本研究结果显示,LYH6早期干预有降低哺乳仔猪F/G与腹泻率的趋势。虽然未达统计学显著水平,但这一趋势提示LYH6可能具有提升仔猪生长性能的潜力。完善的肠屏障功能是保障仔猪健康的关键,而物理屏障是维持肠道稳态的核心防线[26]。本研究中,LYH6早期干预显著上调了仔猪回肠TJP1、OCLN及空肠TJP1表达。OCLNTJP1是紧密连接复合体的核心组分,二者共同参与紧密连接的组装与稳定[27]。本研究结果提示,LYH6可能通过增强小肠上皮紧密连接、降低肠道通透性来改善物理屏障功能。然而,本研究仍存在一定局限性。首先,本试验样本量较小,每组仅6头仔猪,可能影响生长性能指标分析的统计效能,因此有关LYH6改善生长性能的结论仍需在更大样本量条件下进一步验证;其次,本研究仅检测了紧密连接相关基因的mRNA相对表达量,尚未对相应蛋白表达进行测定,也缺乏肠道屏障功能的直接验证。因此,LYH6对肠道物理屏障的改善作用仍需结合蛋白水平、组织学结果及功能性指标进行更全面的确认。
此外,本研究结果显示,LYH6干预还显著增加了仔猪结肠杯状细胞数量。杯状细胞是肠道化学屏障的功能执行者,其分泌的黏蛋白可在上皮表面形成保护性黏液层[28]。已有研究证实,B. ovatus ATCC 8483可促进结肠炎模型小鼠肠上皮细胞增殖和杯状细胞生成[14]。本研究在健康仔猪上首次观察到类似现象,表明LYH6可能在肠道发育早期即发挥促进屏障成熟的作用。需要指出的是,本研究的试验周期相对较短(13 d),选择这一周期的原因是此时仔猪最易发生腹泻和肠道菌群紊乱。后续需延长观察周期,以验证LYH6是否具备长效益生功能。

3.3 LYH6早期干预对哺乳仔猪机体抗氧化能力和免疫功能的改善作用

T-AOC、SOD和GSH-Px是抗氧化防御系统的关键标志物[14,29-30],而MDA作为脂质过氧化的主要终产物,可直接反映机体氧化损伤程度[31]。研究表明,益生菌及功能性微生物干预可有效缓解机体氧化应激、改善抗氧化状态[32-34]。本研究进一步证实,LYH6早期干预可显著提高哺乳仔猪血清GSH-Px活性,并显著降低MDA含量,提示其可能通过增强机体抗氧化能力、减轻过氧化损伤,维持机体氧化还原稳态。
在免疫调节方面,本研究发现LYH6早期干预使外周血淋巴细胞数量呈下降趋势,并显著升高单核细胞数量。单核细胞属于先天免疫细胞,能够进行吞噬、分泌细胞因子,并在炎症时迁移进入组织,分化成巨噬细胞或单核来源树突细胞;这些细胞还能进行抗原呈递,进一步影响CD4+和CD8+T细胞反应[35]。据此推测,LYH6可能通过激活先天免疫系统发挥免疫调节作用。同时,LYH6显著上调了MLN中抗炎细胞因子IL-10的表达。MLN是反映肠道免疫应答的核心器官,该结果从组织层面证实LYH6具有促进抗炎反应、维持肠道免疫稳态的潜在功能。类似地,口服B. thetaiotaomicron可缓解结肠炎模型小鼠的体重下降[36];肠道Bacteroides相对丰度升高与血清IL-10含量上调密切相关[37],印证了本研究结果。
在结肠微生物区系方面,LYH6早期干预虽未改变菌群的α-多样性,但一定程度重塑了菌群组成:LYH6早期干预倾向于富集Clostridia、Christensenellaceae及典型丁酸生成菌Intestinimonas butyriciproducens。丁酸是肠道上皮细胞的主要能量来源,并具有抗炎和增强屏障功能的作用[38]。由于Bacteroides多数物种具备复杂多糖降解能力,可通过交叉喂养支持产丁酸菌的生长[39],LYH6可能通过这一机制间接促进丁酸生成,进而改善肠道健康。同时,Turicibacter已被证实可参与调控宿主胆汁酸代谢[40],提示LYH6还可能间接参与宿主脂质代谢。这些发现暗示LYH6可能具有肠道菌群调节能力,但需通过粪菌移植或代谢组学分析进一步验证。

4 结论

① LYH6为革兰氏阴性杆菌,不具运动能力和溶血特性,对多黏菌素B等11种抗生素表现为耐药,具备与抗生素协同使用的潜力。
② 补充LYH6活菌(1×10⁹ CFU/头)有降低哺乳仔猪腹泻率、改善F/G的趋势,并能增强肠道物理和化学屏障,改善肠道形态,增强抗氧化和免疫调节能力。
③ LYH6早期干预不改变哺乳仔猪结肠菌群α-多样性,但特异性富集Clostridia、Christensenellaceae等产丁酸相关类群,以及Turicibacter等胆汁酸/脂质代谢相关类群。
④ 以上结果表明,LYH6是具有开发潜力的NGP候选菌株,其具体益生机制及长期效应有待进一步阐明。
[1]
CANIBE N, HØJBERG O, KONGSTED H, et al. Review on preventive measures to reduce post-weaning diarrhoea in piglets[J]. Animals, 2022, 12(19):2585.

DOI

[2]
LAIRD T J, ABRAHAM S, JORDAN D, et al. Porcine enterotoxigenic Escherichia coli:antimicrobial resistance and development of microbial-based alternative control strategies[J]. Veterinary Microbiology, 2021, 258:109117.

DOI

[3]
LUPPI A, GIBELLINI M, GIN T, et al. Prevalence of virulence factors in enterotoxigenic Escherichia coli isolated from pigs with post-weaning diarrhoea in Europe[J]. Porcine Health Management, 2016, 2(1):20.

DOI

[4]
FRIERI M, KUMAR K, BOUTIN A. Antibiotic resistance[J]. Journal of Infection and Public Health, 2017, 10(4):369-378.

DOI PMID

[5]
URBAN-CHMIEL R, MAREK A, STEPIEŃ-PYŚNIAK D, et al. Antibiotic resistance in bacteria-a review[J]. Antibiotics, 2022, 11(8):1079.

DOI

[6]
SU W F, GONG T, JIANG Z P, et al. The role of probiotics in alleviating postweaning diarrhea in piglets from the perspective of intestinal barriers[J]. Frontiers in Cellular and Infection Microbiology, 2022, 12:883107.

DOI

[7]
PANG J M, LIU Y S, KANG L Y, et al. Bifidobacterium animalis promotes the growth of weaning piglets by improving intestinal development,enhancing antioxidant capacity,and modulating gut microbiota[J]. Applied and Environmental Microbiology, 2022, 88(22):e01296-22.

[8]
AL-FAKHRANY O M, ELEKHNAWY E. Next-generation probiotics:the upcoming biotherapeutics[J]. Molecular Biology Reports, 2024, 51(1):505.

DOI

[9]
KANG J J, SUN M Z, CHANG Y, et al. Butyrate ameliorates colorectal cancer through regulating intestinal microecological disorders[J]. Anti-Cancer Drugs, 2023, 34(2):227-237.

DOI

[10]
LUO Y H, LAN C, REN W, et al. Bacteroides thetaiotaomicron:a symbiotic ally against diarrhea along with modulation of gut microbial ecological networks via tryptophan metabolism and AHR-Nrf2 signaling[J]. Journal of Advanced Research, 2026, 80:1-17.

DOI

[11]
WANG W L, GÄNZLE M. Toward rational selection criteria for selection of probiotics in pigs[J]. Advances in Applied Microbiology, 2019, 107:83-112.

DOI PMID

[12]
IHEKWEAZU F D, ENGEVIK M A, RUAN W, et al. Bacteroides ovatus promotes IL-22 production and reduces trinitrobenzene sulfonic acid-driven colonic inflammation[J]. The American Journal of Pathology, 2021, 191(4):704-719.

DOI

[13]
TAN H Z, ZHAO J X, ZHANG H, et al. Novel strains of Bacteroides fragilis and Bacteroides ovatus alleviate the LPS-induced inflammation in mice[J]. Applied Microbiology and Biotechnology, 2019, 103(5):2353-2365.

DOI

[14]
IHEKWEAZU F D, FOFANOVA T Y, QUELIZA K, et al. Bacteroides ovatus ATCC 8483 monotherapy is superior to traditional fecal transplant and multi-strain bacteriotherapy in a murine colitis model[J]. Gut Microbes, 2019, 10(4):504-520.

DOI

[15]
REN W, YU B, YU J, et al. Lower abundance of Bacteroides and metabolic dysfunction are highly associated with the post-weaning diarrhea in piglets[J]. Science China Life Sciences, 2022, 65(10):2062-2075.

DOI

[16]
LUO Y H, REN W, SMIDT H, et al. Dynamic distribution of gut microbiota in pigs at different growth stages:composition and contribution[J]. Microbiology Spectrum, 2022, 10(3):e00688-21.

[17]
DAVIS E C, DINSMOOR A M, WANG M, et al. Microbiome composition in pediatric populations from birth to adolescence:impact of diet and prebiotic and probiotic interventions[J]. Digestive Diseases and Sciences, 2020, 65(3):706-722.

DOI

[18]
YANG Z P, LIU X C, WU Y T, et al. Effect of the microbiome on intestinal innate immune development in early life and the potential strategy of early intervention[J]. Frontiers in Immunology, 2022, 13:936300.

DOI

[19]
ALI N A, HUSSAIN A S. Detection of enterotoxin (hblA,hblC and hblD) genes of Bacillus cereus isolates from different food samples using traditional and molecular methods[J]. Iraqi Journal of Biotechnology, 2015, 14(2):8-20.

[20]
ZHENG P, SONG Y, TIAN Y H, et al. Dietary arginine supplementation affects intestinal function by enhancing antioxidant capacity of a nitric oxide-independent pathway in low-birth-weight piglets[J]. The Journal of Nutrition, 2018, 148(11):1751-1759.

DOI

[21]
LAN C, LI H, SHEN Y Q, et al. Next-generation probiotic candidates targeting intestinal health in weaned piglets:both live and heat-killed Akkermansia muciniphila prevent pathological changes induced by enterotoxigenic Escherichia coli in the gut[J]. Animal Nutrition, 2024, 17:110-122.

DOI

[22]
REUBEN R C, ROY P C, SARKAR S L, et al. Isolation,characterization,and assessment of lactic acid bacteria toward their selection as poultry probiotics[J]. BMC Microbiology, 2019, 19(1):253.

DOI

[23]
SHU W S, HUANG L N. Microbial diversity in extreme environments[J]. Nature Reviews Microbiology, 2022, 20(4):219-235.

DOI

[24]
MCINNES R S, MCCALLUM G E, LAMBERTE L E, et al. Horizontal transfer of antibiotic resistance genes in the human gut microbiome[J]. Current Opinion in Microbiology, 2020, 53:35-43.

DOI PMID

[25]
BARLOW S, DYBING E, COLLINS J D, et al. Introduction of a qualified presumption of safety (QPS) approach for assessment of selected microorganisms referred to EFSA-opinion of the scientific committee[J]. The EFSA JOURNAL, 2007, 587:1-16.

[26]
VANCAMELBEKE M, VERMEIRE S. The intestinal barrier:a fundamental role in health and disease[J]. Expert Review of Gastroenterology & Hepatology, 2017, 11(9):821-834.

[27]
CHELAKKOT C, GHIM J, RYU S H. Mechanisms regulating intestinal barrier integrity and its pathological implications[J]. Experimental & Molecular Medicine, 2018, 50(8):1-9.

[28]
GUSTAFSSON J K, JOHANSSON M E V. The role of goblet cells and mucus in intestinal homeostasis[J]. Nature Reviews Gastroenterology & Hepatology, 2022, 19(12):785-803.

[29]
FU R Q, CHEN D W, TIAN G, et al. Effect of dietary supplementation of Bacillus coagulans or yeast hydrolysates on growth performance,antioxidant activity,cytokines and intestinal microflora of growing-finishing pigs[J]. Animal Nutrition, 2019, 5(4):366-372.

DOI

[30]
RIEDL M A, SAXON A, DIAZ-SANCHEZ D. Oral sulforaphane increases phase Ⅱ antioxidant enzymes in the human upper airway[J]. Clinical Immunology, 2009, 130(3):244-251.

DOI

[31]
XU J X, XU C C, CHEN X L, et al. Regulation of an antioxidant blend on intestinal redox status and major microbiota in early weaned piglets[J]. Nutrition, 2014, 30(5):584-589.

DOI PMID

[32]
CAO G T, TAO F, HU Y H, et al. Positive effects of a Clostridium butyricum-based compound probiotic on growth performance,immune responses,intestinal morphology,hypothalamic neurotransmitters,and colonic microbiota in weaned piglets[J]. Food & Function, 2019, 10(5):2926-2934.

[33]
WANG K L, CAO G T, ZHANG H R, et al. Effects of Clostridium butyricum and Enterococcus faecalis on growth performance,immune function,intestinal morphology,volatile fatty acids,and intestinal flora in a piglet model[J]. Food & Function, 2019, 10(12):7844-7854.

[34]
XIN J G, ZENG D, WANG H S, et al. Probiotic Lactobacillus johnsonii BS15 promotes growth performance,intestinal immunity,and gut microbiota in piglets[J]. Probiotics and Antimicrobial Proteins, 2020, 12(1):184-193.

DOI

[35]
ARANGO DUQUE G, DESCOTEAUX A. Macrophage cytokines:involvement in immunity and infectious diseases[J]. Frontiers in Immunology, 2014, 5:491.

[36]
DELDAY M, MULDER I, LOGAN E T, et al. Bacteroides thetaiotaomicron ameliorates colon inflammation in preclinical models of Crohn’s disease[J]. Inflammatory Bowel Diseases, 2019, 25(1):85-96.

DOI

[37]
ZHANG D Y, WANG S X, LI G X, et al. Two doses of Lactobacillus induced different microbiota profiles and serum immune indices in pigs[J]. Journal of Functional Foods, 2023, 102:105405.

DOI

[38]
PARADA VENEGAS D, DE LA FUENTE M K, LANDSKRON G, et al. Short chain fatty acids (SCFAs)-mediated gut epithelial and immune regulation and its relevance for inflammatory bowel diseases[J]. Frontiers in Immunology, 2019, 10:277.

DOI PMID

[39]
FENG J, QIAN Y L, ZHOU Z C, et al. Polysaccharide utilization loci in Bacteroides determine population fitness and community-level interactions[J]. Cell Host & Microbe, 2022, 30(2):200-215.e12.

[40]
LYNCH J B, GONZALEZ E L, CHOY K, et al. Gut microbiota Turicibacter strains differentially modify bile acids and host lipids[J]. Nature Communications, 2023, 14(1):3669.

DOI

文章导航

/