研究论文

发酵啤酒糟对育肥后期荷斯坦公牛生长性能、养分表观消化率、瘤胃发酵参数及瘤胃微生物和代谢物组成的影响

  • 李茜茜 , 1 ,
  • 雷嘉鑫 1, * ,
  • 李骁扬 1 ,
  • 贺斌成 2 ,
  • 王德志 3 ,
  • 宋忠慧 1 ,
  • 马敏 1 ,
  • 李雪梅 1 ,
  • 马燕芬 , 1, **
展开
  • 1 宁夏大学动物科技学院, 银川 750021
  • 2 宁夏壹泰牧业有限公司, 银川 750104
  • 3 宁夏博瑞科技有限公司, 银川 750001
** 马燕芬,研究员,博士生导师,E-mail:

* 同等贡献作者

李茜茜(1998—),女,河南商丘人,博士研究生,研究方向为反刍动物营养与调控。E-mail:

Office editor: 武海龙

收稿日期: 2026-01-30

  网络出版日期: 2026-09-12

基金资助

宁夏反刍动物营养科技创新团队项目(2024CXTD008)

宁夏回族自治区重点研发计划项目(2023BCF01034)

Effects of Fermented Brewer’s Spent Grains on Growth Performance, Nutrient Apparent Digestibility, Rumen Fermentation Parameters and Rumen Microbiota and Metabolites Composition of Holstein Bulls in Late Fattening Period

  • LI Xixi , 1 ,
  • LEI Jiaxin 1 ,
  • LI Xiaoyang 1 ,
  • HE Bincheng 2 ,
  • WANG Dezhi 3 ,
  • SONG Zhonghui 1 ,
  • MA Min 1 ,
  • LI Xuemei 1 ,
  • MA Yanfen , 1, **
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Yitai Animal Husbandry Co., Ltd., Yinchuan 750104, China
  • 3 Ningxia Borui Technology Co., Ltd., Yinchuan 750001, China
** professor, E-mail:

* Contributed equally

Received date: 2026-01-30

  Online published: 2026-09-12

摘要

本研究旨在探究发酵啤酒糟(FBSG)对育肥后期荷斯坦公牛生长性能、养分表观消化率、瘤胃发酵参数及瘤胃微生物和代谢物组成的影响。选择14月龄、体重[(583.25±8.22) kg]相近、体况良好的荷斯坦公牛18头,随机分为2组,每组3个重复,每个重复3头牛。对照组(CON组)饲喂基础饲粮,试验组(FBSG组)用FBSG替代基础饲粮中10%的全株玉米青贮。预试期15 d,正试期60 d。结果表明:1)与CON组相比,FBSG组的干物质采食量(DMI)、平均日增重(ADG)及干物质、粗脂肪、中性洗涤纤维和酸性洗涤纤维表观消化率显著或极显著提高(P<0.05或P<0.01)。2)与CON组相比,FBSG组的瘤胃氨态氮、总挥发性脂肪酸、乙酸、丙酸、丁酸和异戊酸含量显著或极显著提高(P<0.05或P<0.01),pH和乙酸/丙酸显著或极显著降低(P<0.05或P<0.01)。3)与CON组相比,在门水平上,FBSG组的瘤胃浮酶菌门、绿弯菌门、疣微菌门、黏细菌门、甲基惊奇菌门、迟杆菌门和硝化螺旋菌门的相对丰度显著提高(P<0.05);在属水平上,FBSG组的瘤胃解琥珀酸菌属、聚乙酸菌属、消化链球菌属、互营球菌属、氨基酸球菌属等的相对丰度显著提高(P<0.05)。4)CON组和FBSG组之间共筛选出129种瘤胃差异代谢物,其中92种代谢物显著上调(P<0.05),37种代谢物显著下调(P<0.05)。代谢物集富集分析结果显示,CON组和FBSG组之间的嘧啶代谢通路、生物素代谢通路、α-亚麻酸和亚油酸代谢通路等发生显著变化(P<0.05)。综上所述,FBSG通过提高养分表观消化率及改善瘤胃发酵参数、微生物组成和代谢物组成,进而提高育肥后期荷斯坦公牛的生长性能。

本文引用格式

李茜茜 , 雷嘉鑫 , 李骁扬 , 贺斌成 , 王德志 , 宋忠慧 , 马敏 , 李雪梅 , 马燕芬 . 发酵啤酒糟对育肥后期荷斯坦公牛生长性能、养分表观消化率、瘤胃发酵参数及瘤胃微生物和代谢物组成的影响[J]. 动物营养学报, 2026 , 38(9) : 6732 -6744 . DOI: 10.12418/CJAN2026.539

Abstract

This study was conducted to investigate the effects of fermented brewer’s spent grains (FBSG) on growth performance, nutrient apparent digestibility, rumen fermentation parameters and rumen microbiota and metabolites composition of Holstein bulls in late fattening period. Eighteen 14-month-old Holstein bulls with similar body weight [(583.25±8.22) kg] and good body condition were randomly divided into 2 groups with 3 replicates per group and 3 bulls per replicate. The control group (CON group) was fed a basal diet, and the experimental group (FBSG group) was fed the basal diet which 10% whole-plant corn silage was replaced with FBSG. The pre-experimental period lasted for 15 days, and the experimental period lasted for 60 days. The results showed as follows: 1) compared with the CON group, the dry matter intake (DMI), average daily gain (ADG) and apparent digestibility of dry matter, ether extract, neutral detergent fiber and acid detergent fiber of the FBSG group were significantly or extremely significantly increased (P<0.05 or P<0.01). 2) Compared with the CON group, the contents of ammonia nitrogen, total volatile fatty acids, acetic acid, propionic acid, butyric acid and isovaleric acid in rumen of the FBSG group were significantly or extremely significantly increased (P<0.05 or P<0.01), and the pH and acetic acid/propionic acid ratio were significantly or extremely significantly decreased (P<0.05 or P<0.01). 3) Compared with the CON group, at the phylum level, the relative abundances of Planctomycetota, Chloroflexi, Verrucomicrobiota, Myxococcota, Methylomirabilota, Latescibacterota and Nitrospirota in rumen of the FBSG group were significantly increased (P<0.05); at the genus level, the relative abundances of Succiniclasticum, Acetitomaculum, Peptostreptococcus, Syntrophococcus and Acidaminococcus et al in rumen of the FBSG group were significantly increased (P<0.05). 4) A total of 129 rumen differential metabolites were identified between CON group and FBSG group, among which 92 metabolites were significantly up-regulated (P<0.05), and 37 metabolites were significantly down-regulated (P<0.05). Metabolite set enrichment analysis results showed that the significant changes in pyrimidine metabolism pathway, biotin metabolism pathway, α-linolenic acid and linoleic acid metabolism pathway et al between CON group and FBSG group (P<0.05). In conclusion, the FBSG improves nutrient apparent digestibility and rumen fermentation parameters, microbiota and metabolites composition, thereby improving the growth performance of Holstein bulls in late fattening period.

在全球可持续发展背景下,农作物副产品的高价值转化已成为整合生物经济与循环经济的重要路径。啤酒糟是酿酒工业中最丰富的木质纤维素副产品,因其富含蛋白质、多糖、半纤维素等营养组分,与反刍动物消化生理特点高度适配[1]。啤酒糟在干物质(DM)条件下含有60%~80%的木质纤维素和13%~30%的蛋白质[2],优质的蛋白质及丰富的膳食纤维、多酚类抗氧化活性物质和矿物质使啤酒糟具有广阔应用前景。然而,啤酒糟较高的水分含量导致其在储存和运输过程中极易腐败滋生黄曲霉毒素,极大限制了其在反刍动物饲粮中的跨区域调配和规模化应用。复合微生物固态发酵技术能够显著提高酒糟饲料的蛋白质合成和氨基酸积累,并同步实现脱毒、纤维降解和营养强化,改善其风味和适口性[3]。研究表明,发酵酒糟可提高育肥牦牛平均日增重(ADG)及DM和中性洗涤纤维(NDF)表观消化率,降低料重比(F/G)[4];益生菌发酵白酒糟可增加育肥牛瘤胃液中酶活性,提高丙酸生成菌和纤维素降解菌相对丰度,并抑制致病菌生长繁殖[5];发酵葡萄酒糟可通过激活关岭牛肠道微生物介导的亚油酸、α-亚麻酸和色氨酸代谢,降低饲喂葡萄酒糟的不良反应[6]。然而,目前有关发酵啤酒糟(fermented brewer’s spent grain,FBSG)在全混合日粮(total mixed ration,TMR)中替代全株玉米青贮的研究仍较为匮乏,且荷斯坦公牛的养分代谢规律、瘤胃微生物群落结构与专用肉牛品种存在显著差异。因此,本试验旨在探究FBSG替代TMR中部分全株玉米青贮对育肥后期荷斯坦公牛生长性能、瘤胃微生物和代谢物组成的影响,以期为啤酒糟的高效利用和开发节本增效的育肥牛饲粮提供理论依据与技术支撑。

1 材料与方法

1.1 试验材料

新鲜啤酒糟由宁夏壹泰牧业有限公司提供。发酵剂由宁夏博瑞科技有限公司提供,主要成分为产朊假丝酵母(1.0×10⁷ CFU/g)、酿酒酵母(2.0×109 CFU/g)、枯草芽孢杆菌(1.0×107 CFU/g)、植物乳杆菌(6.0×107 CFU/g)、黑曲霉(10 CFU/g)和纤维素酶(20 U/g)等。啤酒糟发酵前后的营养水平见表1
表1 啤酒糟发酵前后的营养水平(干物质基础)

Table 1 Nutrient levels of brewers’ spent grains before and after fermentation (DM basis)

项目
Items
含量Content
啤酒糟
BSG
发酵啤酒糟
FBSG
干物质(湿物质基础)
DM (wet matter basis)
24.90 34.02
粗蛋白质CP 23.85 25.18
粗脂肪EE 8.94 7.03
酸性洗涤纤维ADF 23.78 19.84
中性洗涤纤维NDF 57.62 43.65
粗灰分Ash 4.78 3.98

1.2 试验设计

本研究所使用的试验动物和方案已获得宁夏大学实验动物伦理委员会批准(审批编号:宁夏大学伦理2024-F-117号)。选择14月龄、体重[(583.25±8.22) kg]相近、体况良好的育肥后期荷斯坦公牛18头,随机分成2组,每组3个重复,每个重复3头牛。对照组(CON组)饲喂基础饲粮;试验组(FBSG组)为满足育肥后期荷斯坦公牛对有效纤维和能量的营养需求,在保证等能等氮的条件下用FBSG替代基础饲粮中10%的全株玉米青贮。基础饲粮参照《肉牛营养需要量》(NY/T 815—2004)配制,其组成及营养水平见表2。试验期75 d,其中预试期15 d,正试期60 d。
表2 基础饲粮组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of basal diets (DM basis)

项目
Items
组别Groups
CON FBSG
原料Ingredients
玉米青贮Corn silage 30.00 20.00
稻草Rice straw 10.00 10.00
发酵啤酒糟FBSG 10.00
压片玉米Pressed corn 34.50 35.82
豆粕Soybean meal 16.20 14.88
干白酒糟Dried white wine lees 3.00 3.00
小麦麸Wheat bran 3.00 3.00
碳酸氢钠NaHCO3 0.50 0.50
预混料Premix1) 1.00 1.00
磷酸氢钙CaHPO4 1.30 1.30
食盐NaCl 0.50 0.50
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 2.78 2.79
粗蛋白质CP 15.16 15.20
粗脂肪EE 2.96 3.47
淀粉Starch 36.94 36.01
酸性洗涤纤维ADF 19.61 16.73
中性洗涤纤维NDF 28.70 27.68
钙Ca 0.73 0.75
磷P 0.39 0.39

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:Cu 10 mg,Fe 65 mg,Mn 30 mg,Zn 25 mg,I 0.5 mg,Se 0.1 mg,Co 0.1 mg,VA 4 000 IU,VD 500 IU,VE 40 IU。

2)代谢能为计算值(参照NY/T 816—2021),其余为实测值。ME was a calculated value (referred to NY/T 816—2021), while the others were measured values.

1.3 饲养管理

试验于2024年6—10月在宁夏壹泰牧业有限公司进行。试验牛饲养于同一牛舍,采用相同的饲养管理条件,常规光照和通风,定期对圈舍进行清理和消毒。分别于每日06:00和18:00进行饲喂,所有牛只自由采食和饮水。

1.4 样品采集与指标测定

1.4.1 生长性能

每天记录投料量和剩料量,根据饲粮DM含量计算每头试验牛的干物质采食量(DMI)。于正试期第1、30和60天晨饲前,对试验牛进行称重并记录体重数据,并计算每头牛的ADG和F/G。

1.4.2 养分表观消化率

于正试期58~60天连续3 d采集饲粮和粪便样品,在65 ℃烘干48 h后粉碎过40目筛待测。饲粮和粪便中DM、粗蛋白质(CP)、粗脂肪(EE)、酸性洗涤纤维(ADF)、NDF及盐酸不溶灰分(AIA)含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、NY/T 1459—2022、GB/T 20806—2022和GB/T 23742—2009的方法测定,并计算干物质表观消化率(DMD)、粗蛋白质表观消化率(CPD)、粗脂肪表观消化率(EED)、酸性洗涤纤维表观消化率(ADFD)和中性洗涤纤维表观消化率(NDFD),计算公式如下:
养分表观消化率(%)=[1-(粪便中该养分含量×饲粮中AIA含量)/(饲粮中该养分含量×粪便中AIA含量)]×100。

1.4.3 瘤胃发酵参数

正试期第60天,于晨饲前2 h用瘤胃管空腹采集约200 mL瘤胃液,将前50 mL丢弃以防唾液污染。瘤胃液经4层纱布过滤后,用10 mL冻存管进行分装,于-80 ℃保存待测。瘤胃液pH用便携式pH计(PHB-4型,上海欧史拓尔实业有限公司)测定,氨态氮(NH3-N)含量用比色法测定,挥发性脂肪酸(VFA)含量用气相色谱仪(SP-3420A,北京北分瑞利分析仪器有限责任公司)测定[7]

1.4.4 瘤胃微生物组成

从样本中提取基因组DNA后,用带有barcode的特异引物341F(5'-CCTACGGGNGGCWGCAG-3')和806R(5'-GGACTACHVGGGTATCTAAT-3')对16S rDNA的V3~V4区进行PCR扩增。PCR产物利用Quant-iT PicoGreen dsDNA Assay Kit[赛默飞世尔科技(中国)有限公司]在Microplate Reader(FLx800,美国BioTek公司)上进行定量,PCR扩增体系为50 μL:5×Q5@Reaction Buffer 10 μL,5×Q5@High GC Enhancer 10 μL,2.5 mmol/L dNTPs 1.5 μL,Primer F (10 μmol/L) 1.5 μL,Primer R (10 μmol/L) 1.5 μL,Q5@High-Fidelity DNA Polymerase 0.2 μL,Template 15.3 μL (50 ng),加入水补充至50 μL。利用TruSeq Nano DNA LT Library Prep Kit(美国Illumina公司)进行建库,使用Illumina NovaSeq利用NovaSeq 6000 SP Reagent Kit(美国Illumina公司)进行2×250 bp的双端测序,测序工作委托广州基迪奥生物科技有限公司完成。通过线性判别分析效应大小(linear discriminant analysis effect size,LEfSe)分析,以线性判别分析(linear discriminant analysis,LDA)>2、P<0.05为阈值,筛选2组育肥后期荷斯坦公牛瘤胃的差异微生物。

1.4.5 瘤胃代谢物组成

委托广州基迪奥生物科技有限公司完成瘤胃代谢组分析,测定方法参照Ren等[8]。基于正交偏最小二乘方判别分析(orthogonal partial least squares discriminant analysis,OPLS-DA)模型,以变量投影重要性(variable importance in project,VIP)>1、P<0.05为标准,筛选2组育肥后期荷斯坦公牛瘤胃的差异代谢物。

1.5 数据处理与统计分析

使用Excel 2021对数据进行初步整理,采用Graphpad Prism 8.0软件中的独立样本t检验进行组间差异统计分析,数据以平均值和标准误(SE)表示,P<0.05为差异显著,P<0.01为差异极显著。通过OmicShare基迪奥生物信息云平台(https://www.omicshare.com/tools)将瘤胃微生物和代谢物分别与生长性能进行Spearman相关性分析。

2 结果

2.1 FBSG对育肥后期荷斯坦公牛生长性能的影响

表3可知,与CON组相比,FBSG组的DMI极显著提高(P<0.01),ADG显著提高(P<0.05)。
表3 FBSG对育肥后期荷斯坦公牛生长性能的影响

Table 3 Effects of FBSG on growth performance of Holstein bulls in late fattening period

项目
Items
组别Groups 标准误
SE
P
P-value
CON FBSG
初始体重IBW/kg 585.5 583.0 25.104 0.924
终末体重FBW/kg 646.5 673.5 29.713 0.400
干物质采食量DMI/(kg/d) 10.03B 11.56A 0.162 <0.001
平均日增重ADG/(kg/d) 1.02b 1.55a 0.176 0.028
料重比F/G 10.17 8.04 1.471 0.198

同行数据肩标不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01), while with no letter superscript mean no significant difference (P>0.05). The same as below.

2.2 FBSG对育肥后期荷斯坦公牛养分表观消化率的影响

表4可知,与CON组相比,FBSG组的DMD和NDFD极显著提高(P<0.01),EED和ADFD显著提高(P<0.05)。
表4 FBSG对育肥后期荷斯坦公牛养分表观消化率的影响

Table 4 Effects of FBSG on nutrient apparent digestibility of Holstein bulls in late fattening period

项目
Items
组别Groups 标准误
SE
P
P-value
CON FBSG
干物质表观消化率DMD 71.40B 73.45A 0.264 <0.001
粗蛋白质表观消化率CPD 67.38 71.03 1.726 0.061
粗脂肪表观消化率EED 79.49b 83.49a 1.042 0.044
酸性洗涤纤维表观消化率ADFD 51.61b 56.50a 2.132 0.028
中性洗涤纤维表观消化率NDFD 59.52B 64.33A 1.668 0.006

2.3 FBSG对育肥后期荷斯坦公牛瘤胃发酵参数的影响

表5可知,与CON组相比,FBSG组的瘤胃NH3-N、总挥发性脂肪酸(TVFA)、丁酸和异戊酸含量极显著提高(P<0.01),乙酸和丙酸含量显著提高(P<0.05),pH显著降低(P<0.05),乙酸/丙酸极显著降低(P<0.01)。
表5 FBSG对育肥后期荷斯坦公牛瘤胃发酵参数的影响

Table 5 Effects of FBSG on rumen fermentation parameters of Holstein bulls in late fattening period

项目
Items
组别Groups 标准误
SE
P
P-value
CON FBSG
pH 6.76a 6.40b 0.142 0.034
氨态氮NH3-N/(mg/L) 5.12B 14.20A 1.516 <0.001
总挥发性脂肪酸TVFA/(mmol/L) 32.87B 46.67A 3.193 <0.001
乙酸Acetic acid/(mmol/L) 16.26b 24.61a 4.037 0.043
丙酸Propionic acid/(mmol/L) 10.10b 17.11a 2.112 0.039
丁酸Butyric acid/(mmol/L) 4.60B 5.63A 0.302 0.004
异丁酸Isobutyric acid/(mmol/L) 0.85 1.43 0.468 0.254
戊酸Valeric acid/(mmol/L) 0.16 0.23 0.071 0.430
异戊酸Isovaleric acid/(mmol/L) 0.24B 0.78A 0.164 0.005
乙酸/丙酸Acetic acid/propionic acid 1.57A 1.37B 0.041 <0.001

2.4 FBSG对育肥后期荷斯坦公牛瘤胃微生物组成的影响

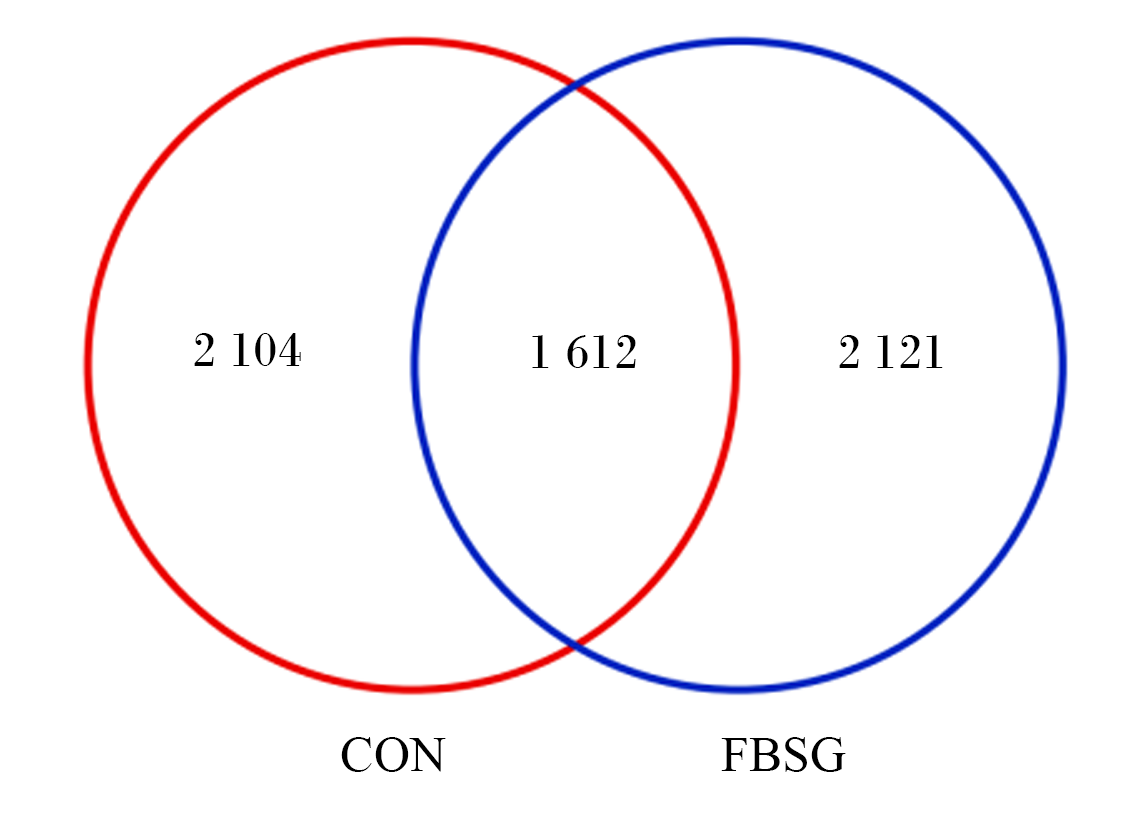
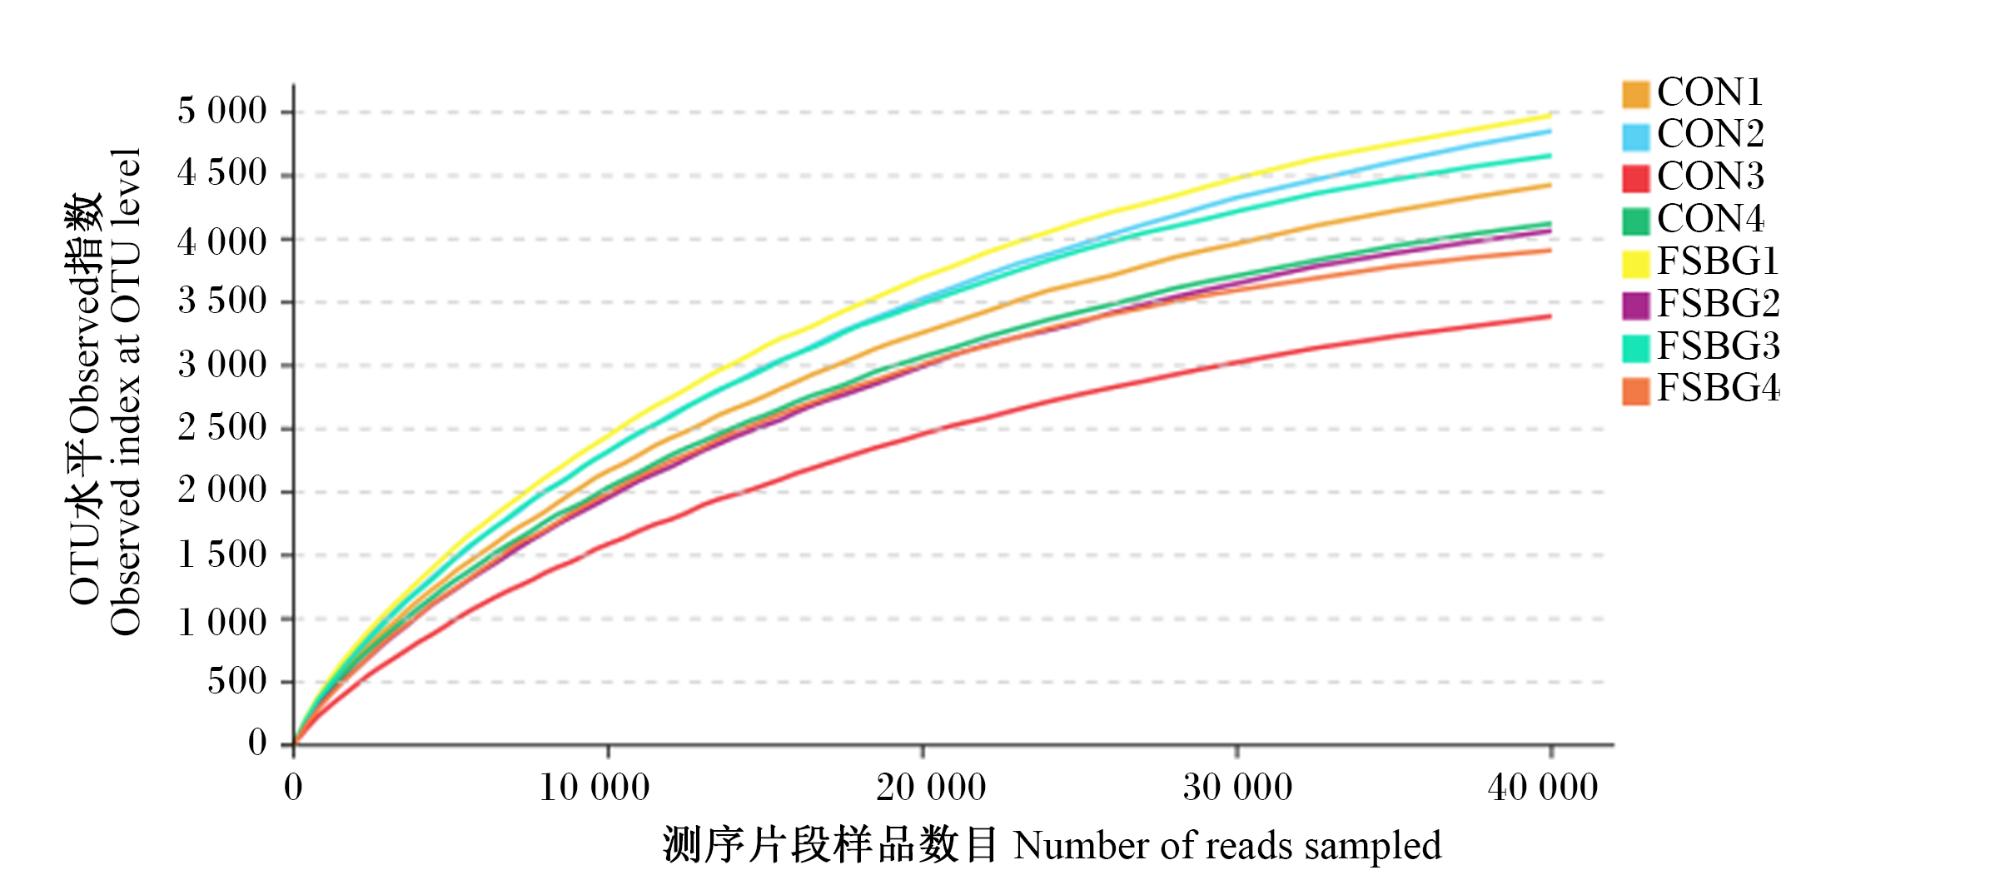
图1可知,通过对育肥后期荷斯坦公牛瘤胃微生物进行操作分类单元(OTU)分析发现,CON组和FBSG组共含有5 837个OTU,其中2组共有1 612个OTU,CON组特有2 104个OTU,FBSG组特有2 121个OTU。由图2可知,2组样本的OTU水平Observed指数随着测序片段样本数目增加而趋于稳定,表明当前测序深度和样本量合理,可用于后续分析。
图1 OTU水平Venn图

Fig.1 Venn plot at OTU level

CON:CON组 CON group;FBSG:FBSG组 FBSG group。下图同 the same as below。

图2 稀释曲线

Fig.2 Rarefaction curve

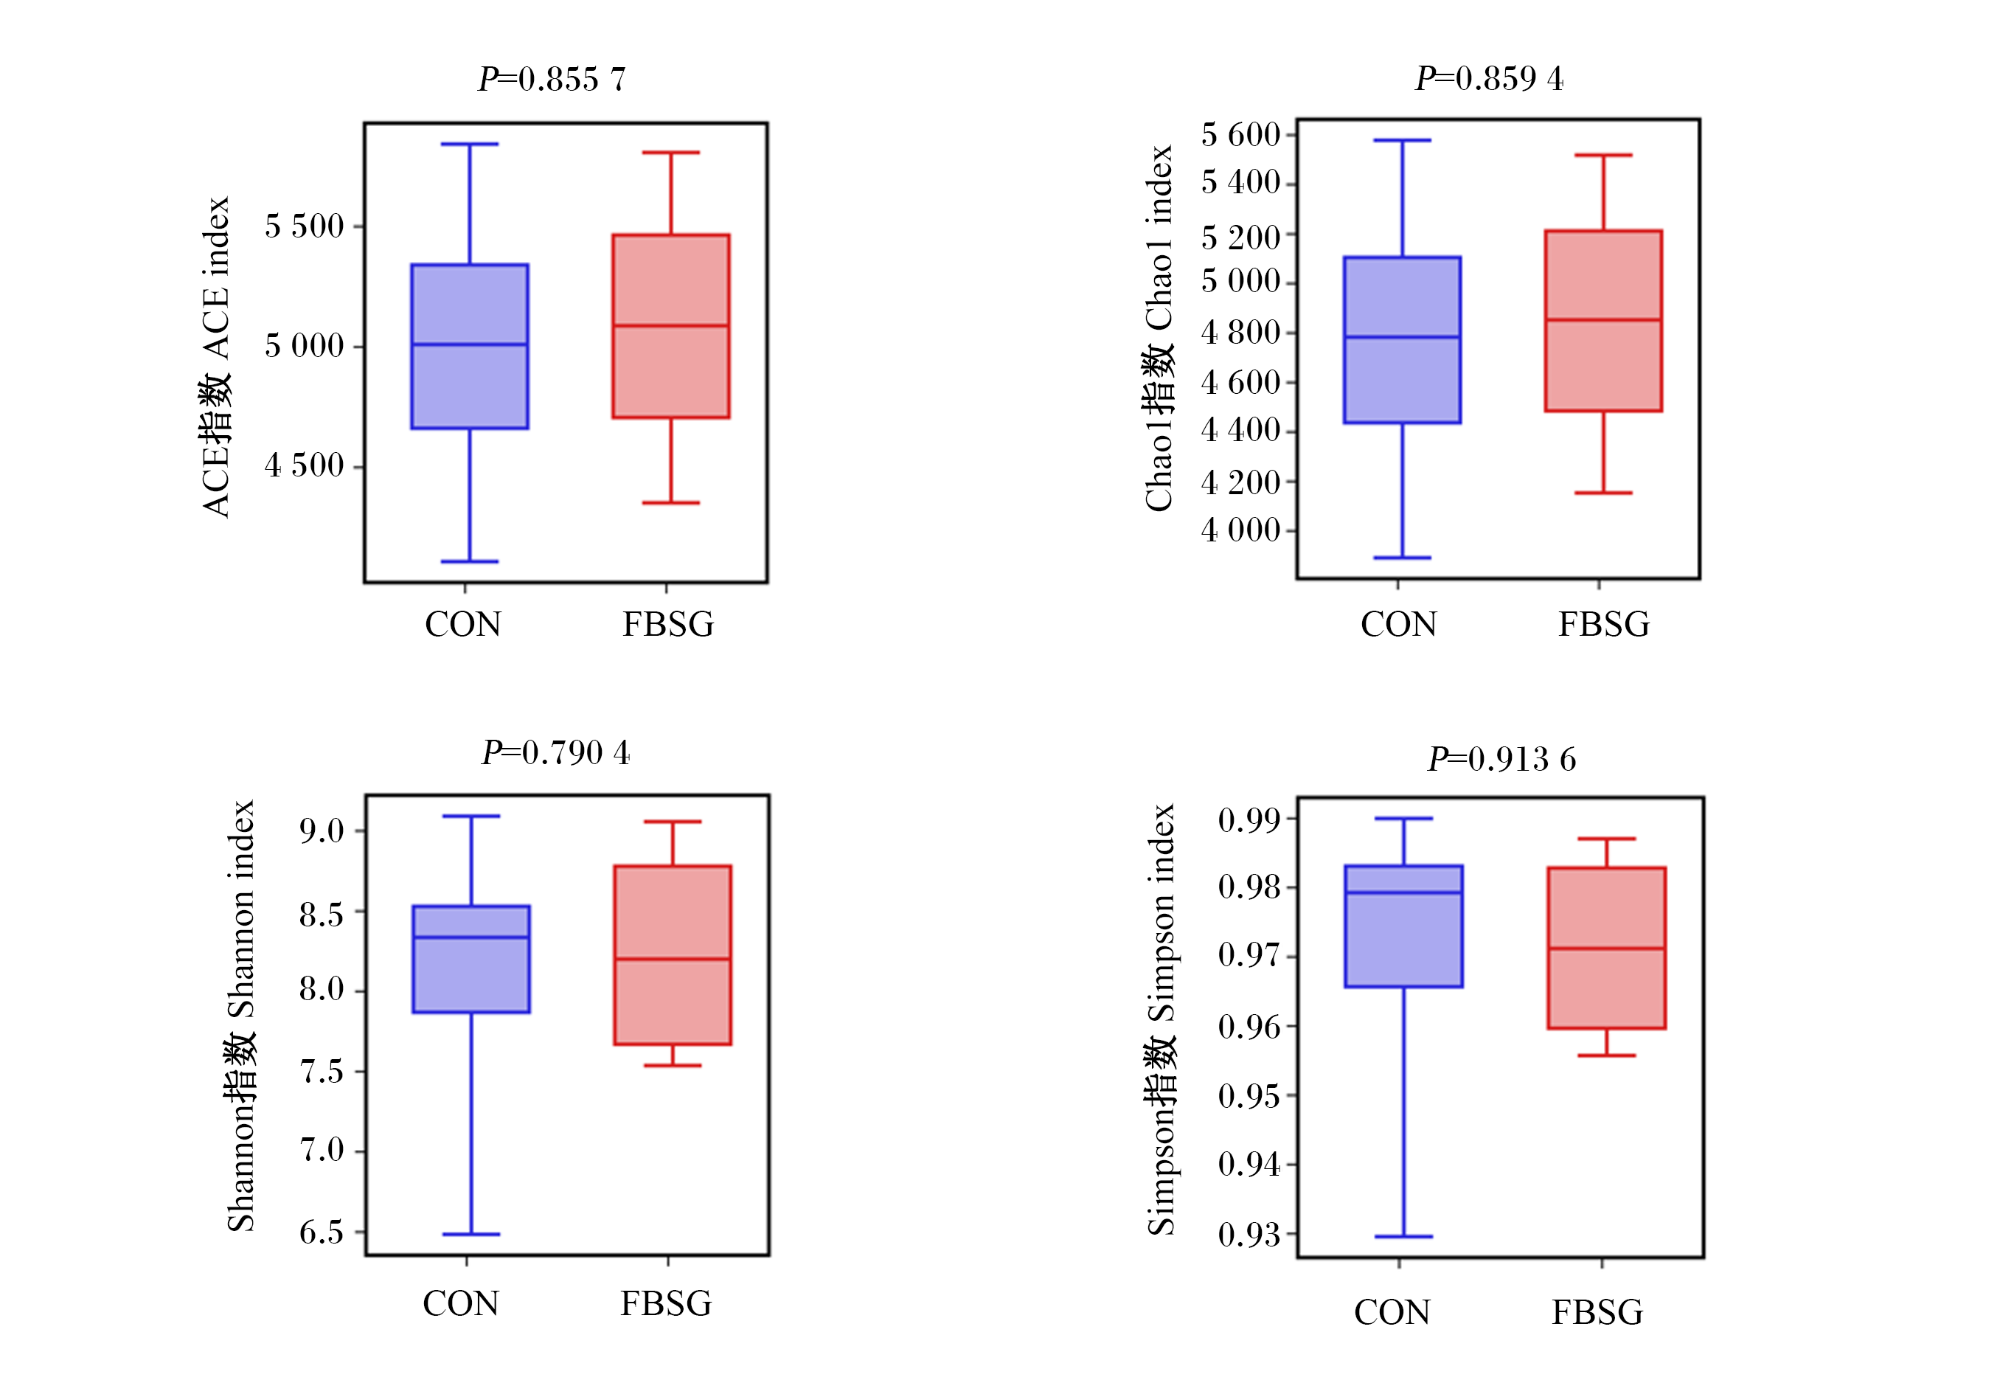
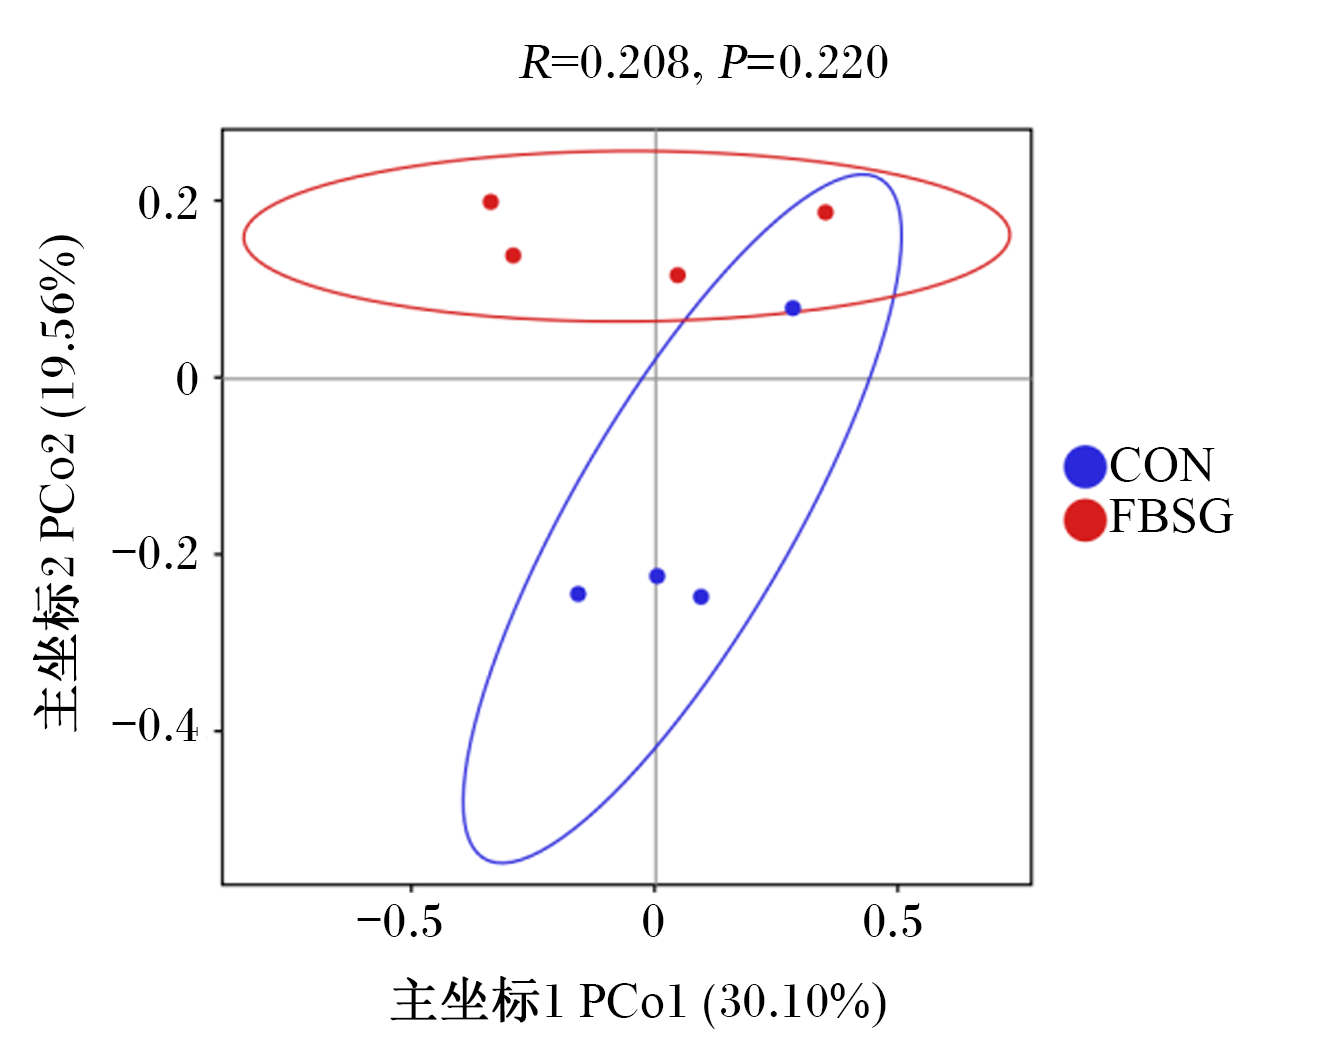
图3可知,瘤胃微生物α多样性分析表明,CON组与FBSG组之间ACE、Chao1、Shannon和Simpson指数均无显著差异(P>0.05),表明FBSG并未显著改变育肥后期荷斯坦公牛瘤胃微生物的多样性和丰富度。由图4可知,基于主坐标分析(PCoA)的β多样性分析发现,主坐标1(PCo1)的差异贡献率为30.10%,主坐标2(PCo2)的差异贡献率为19.56%,CON组与FBSG组之间的样本相对分离,表明FBSG能够对育肥后期荷斯坦公牛瘤胃微生物结构产生一定的影响。
图3 瘤胃微生物α多样性分析

Fig.3 Rumen microbiota α diversity analysis

图4 基于加权Unifrac距离的PCoA图

Fig.4 PCoA plot based on weighted Unifrac distance

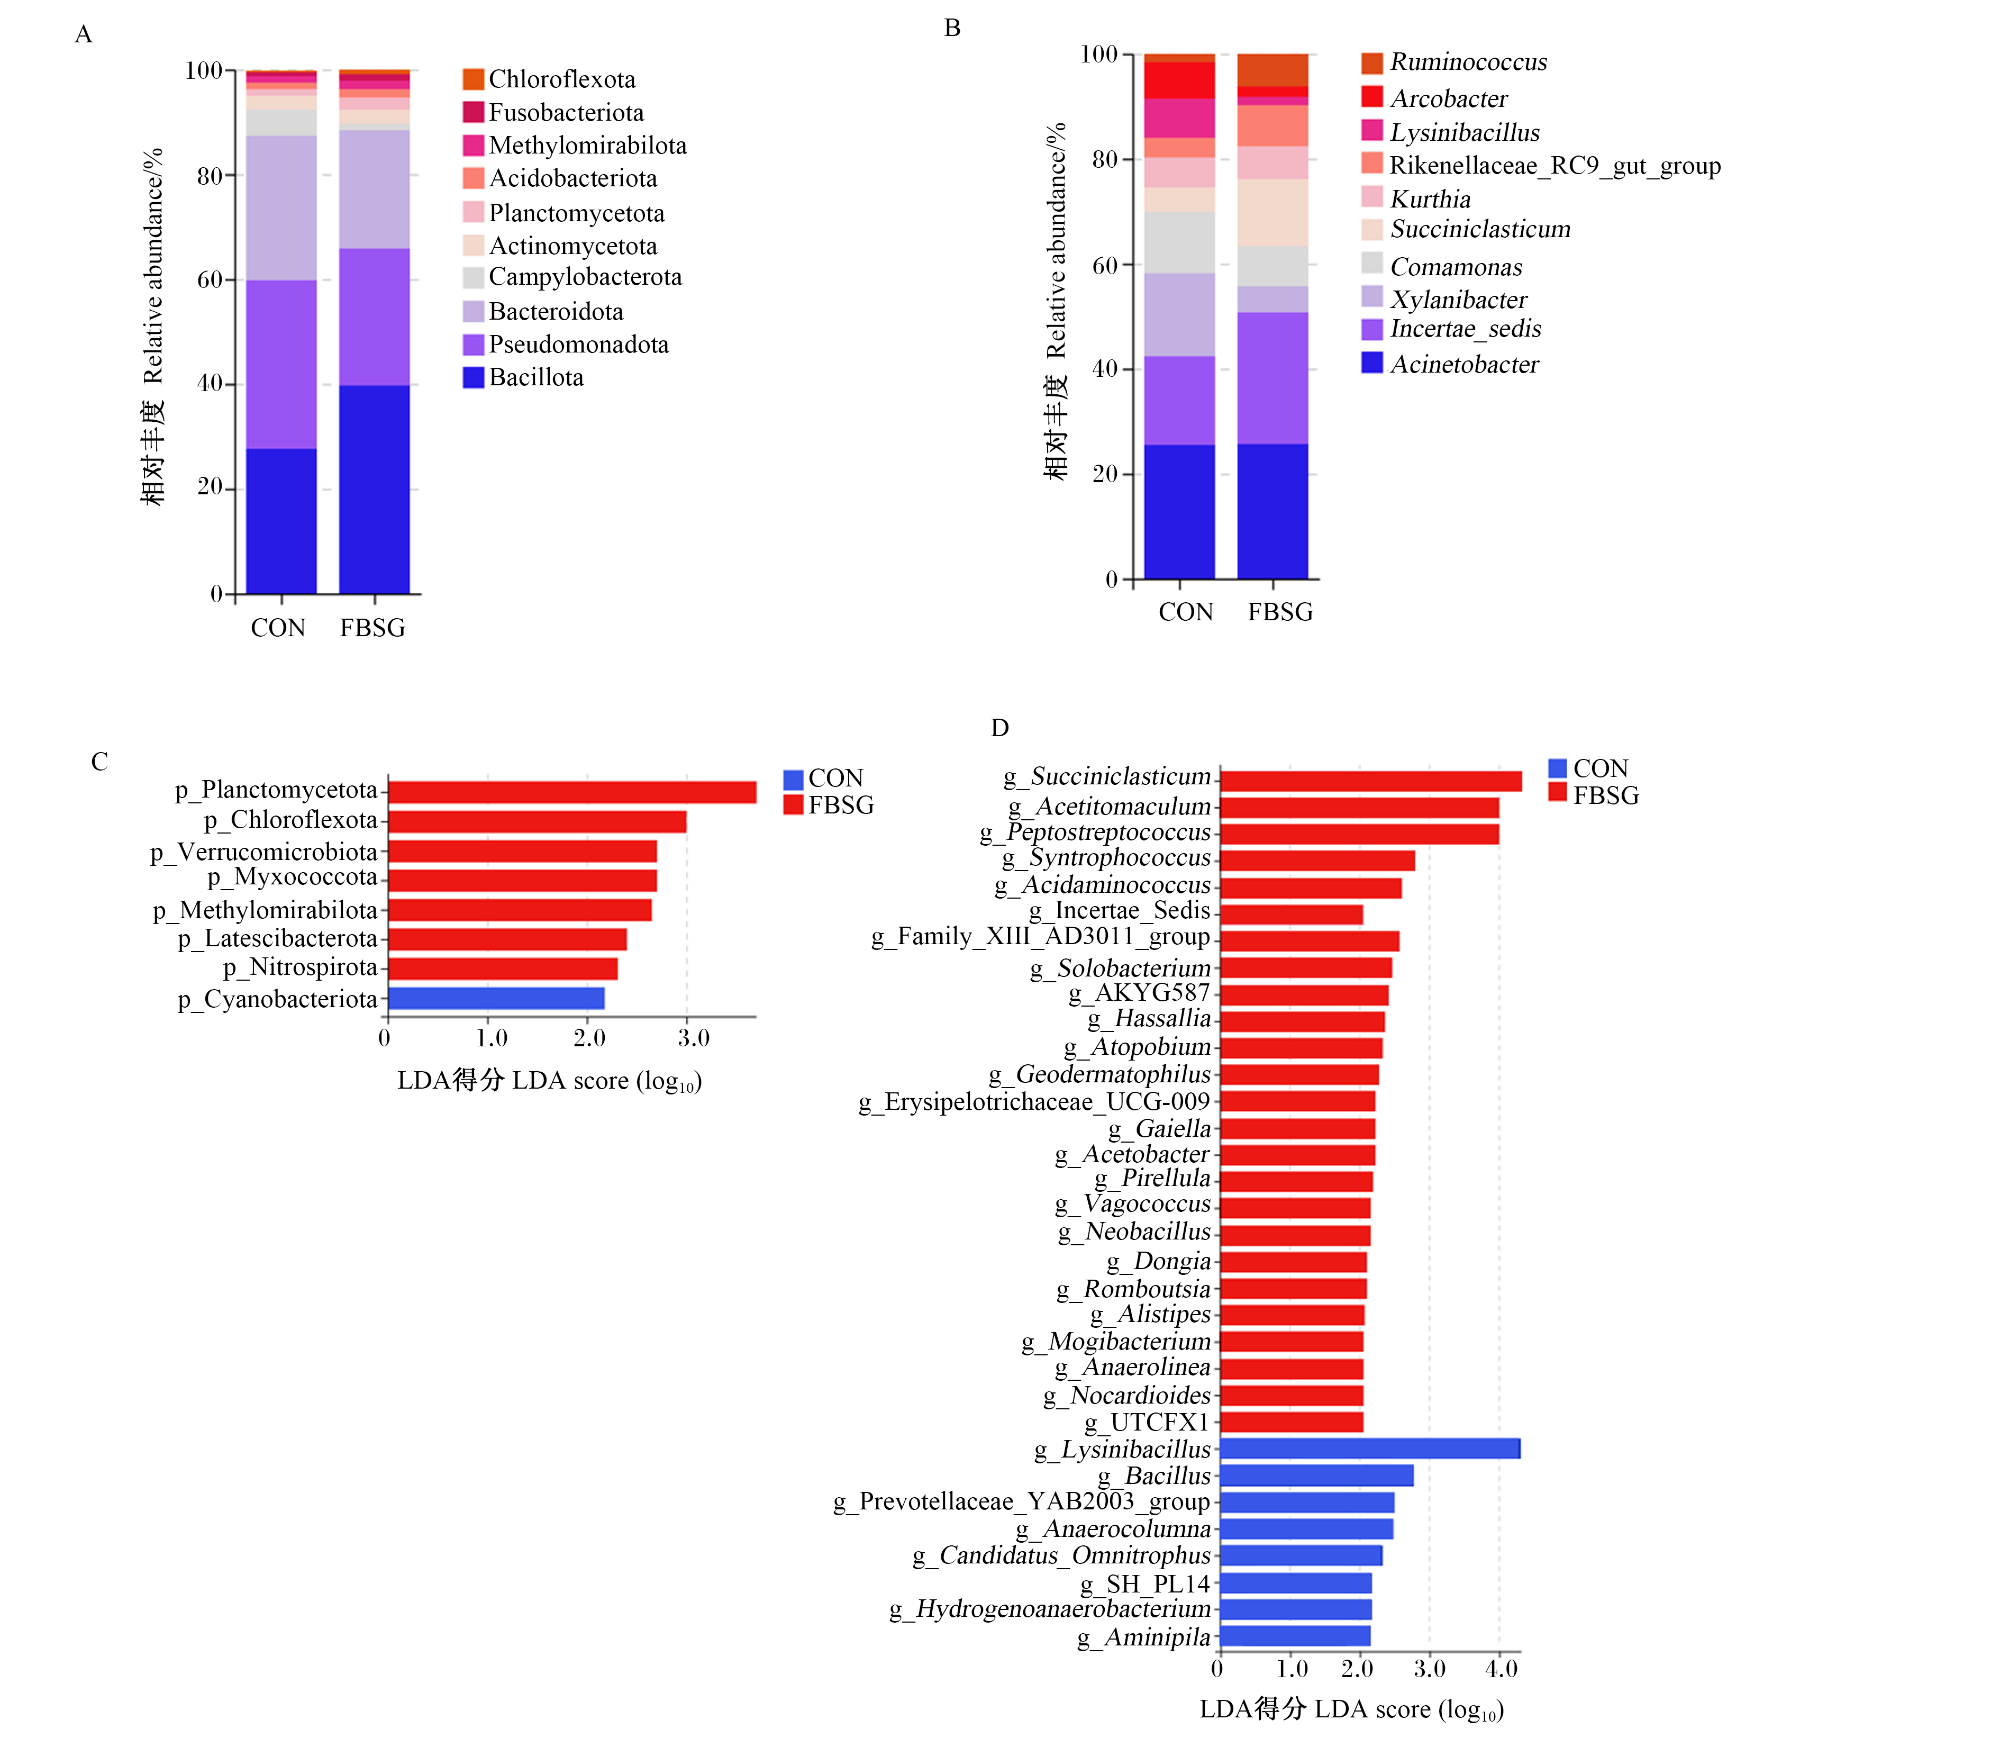
图5可知,在门水平上,CON组和FBSG组的瘤胃微生物均以芽孢杆菌门、变形菌门和拟杆菌门为优势菌门,占总相对丰度的80%以上;FBSG组的瘤胃浮酶菌门、绿弯菌门、疣微菌门、黏细菌门、甲基惊奇菌门、迟杆菌门和硝化螺旋菌门的相对丰度显著高于CON组(P<0.05)。在属水平上,CON组和FBSG组的瘤胃微生物均以不动杆菌属和Incertae_Sedis为优势菌属;FBSG组的瘤胃解琥珀酸菌属、聚乙酸菌属、消化链球菌属、互营球菌属、氨基酸球菌属等25个菌属的相对丰度显著高于CON组(P<0.05)(图5-D)。
图5 瘤胃微生物组成与差异分析

Bacillota:芽孢杆菌门;Pseudomonadota:变形菌门;Bacteroidota:拟杆菌门;Campylobacterota:弯曲菌门;Actinomycetota:放线菌门;Planctomycetota:浮霉菌门;Acidobacteriota:酸杆菌门;Methylomirabilota:甲基惊奇菌门;Fusobacteriota:梭杆菌门;Chloroflexota:绿弯菌门;Verrucomicrobiota:疣微菌门;Myxococcota:黏细菌门;Latescibacterota:迟杆菌门;Nitrospirota:硝化螺旋菌门;Cyanobacteriota:蓝细菌门;Acinetobacter:不动杆菌属;Comamonas:丛毛单胞菌属;Succiniclasticum:解琥珀酸菌属;Kurthia:库特氏菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Lysinibacillus:赖氨酸芽孢杆菌属;Arcobacter:弓形菌属;Ruminococcus:瘤胃球菌属;Acetitomaculum:聚乙酸菌属;Peptostreptococcus:消化链球菌属;Syntrophococcus:互营球菌属;Acidaminococcus:氨基酸球菌属;Solobacterium:梭状菌属;Atopobium:奇异菌属;Geodermatophilus:地嗜皮菌属;Erysipelotrichaceae_UCG-009:丹毒丝菌科UCG-009群;Acetobacter:醋杆菌属;Pirellula:小梨形菌属;Vagococcus:漫游球菌属;Neobacillus:尼氏芽孢杆菌属;Romboutsia:罗姆布茨菌属;Alistipes:另枝菌属;Mogibacterium:摩根菌属;Anaerolinea:厌氧绳菌属;Nocardioides:类诺卡菌属;Bacillus:芽孢杆菌属;Prevotellaceae_YAB2003_group:普雷沃氏菌科YAB2003群;Hydrogenoanaerobacterium:嗜糖厌氧产氢杆菌属;Aminipila:窖池氨基酸球形菌属。图6同 the same as Fig.6.

A:门水平瘤胃微生物组成;B:属水平瘤胃微生物组成;C:门水平LDA得分柱状图;D:属水平LDA得分柱状图。A: rumen microbiota composition at phylum level; B: rumen microbiota composition at genus level; C: LDA score bar plot at phylum level; D: LDA score bar plot at genus level.

Fig.5 Rumen microbiota composition and differential analysis

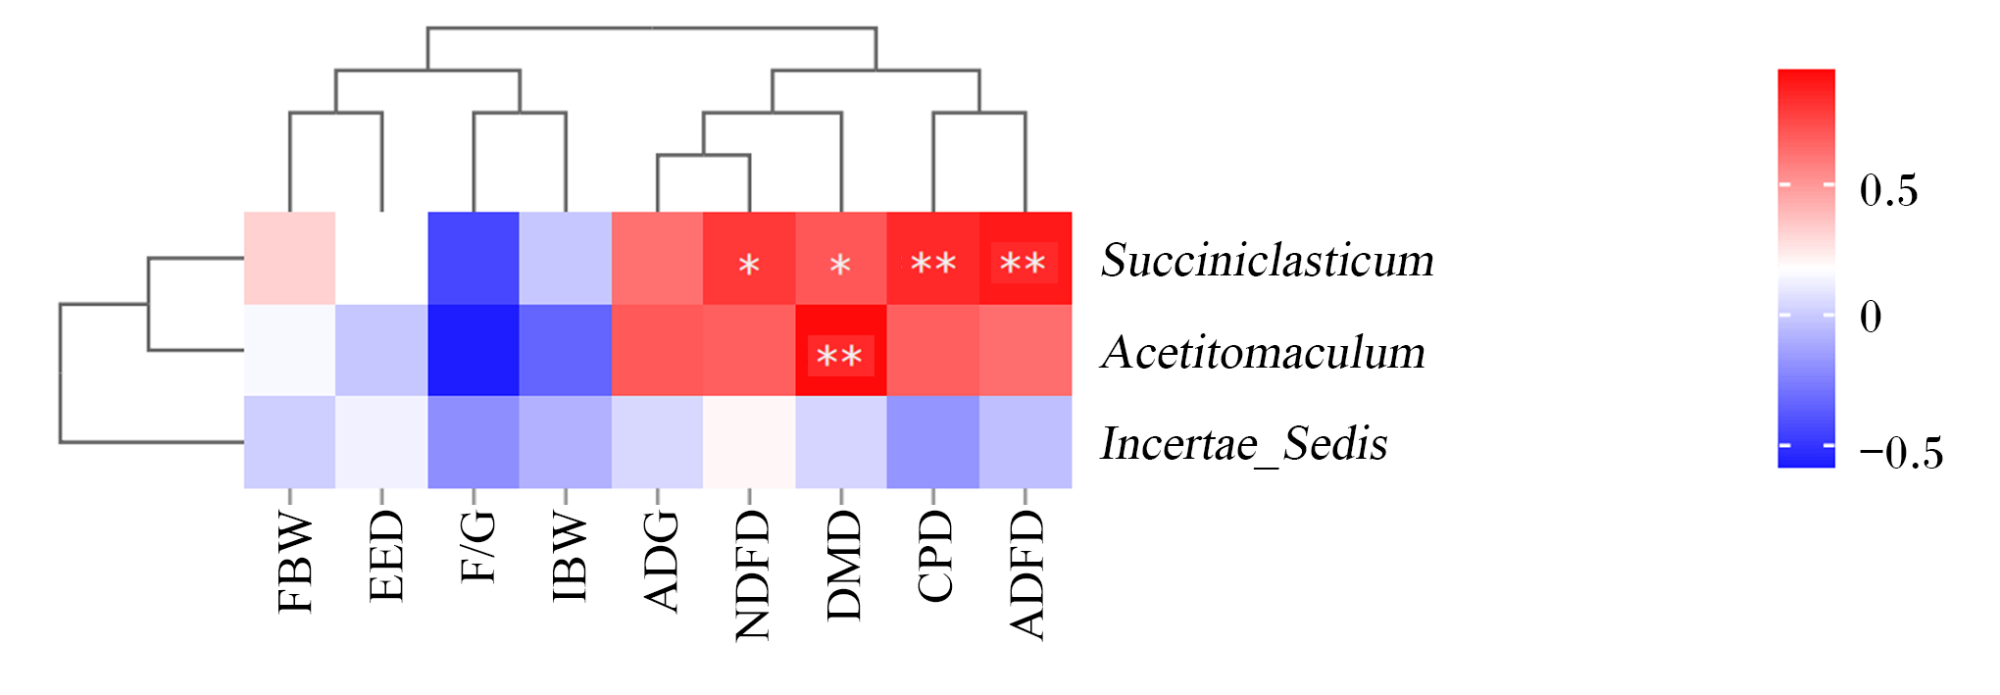
为了探究瘤胃微生物对育肥后期荷斯坦公牛生长性能和养分表观消化率的潜在调控机制,将属水平相对丰度大于1%的差异微生物与生长性能和养分表观消化率进行Spearman相关性分析。由图6可知,瘤胃解琥珀酸菌属相对丰度与NDFD和DMD呈显著正相关(P<0.05),与CPD和ADFD呈极显著正相关(P<0.01);瘤胃聚乙酸菌属相对丰度与DMD呈极显著正相关(P<0.01)。
图6 瘤胃微生物与生长性能和养分表观消化率的关联热图

FBW:终末体重 final body weight;EED:粗脂肪表观消化率 ether extract apparent digestibility;F/G:料重比 feed to gain ratio;IBW:初始体重 initial body weight;ADG:平均日增重 average daily gain;NDFD:中性洗涤纤维表观消化率 neutral detergent fiber apparent digestibility;DMD:干物质表观消化率 dry matter apparent digestibility;CPD:粗蛋白质表观消化率 crude protein apparent digestibility;ADFD:酸性洗涤纤维表观消化率 acid detergent fiber apparent digestibility;*:显著相关 significant correlation (P<0.05);**:极显著相关 extremely significant correlation (P<0.01)。图9同 the same as Fig.9

Fig.6 Heat map of correlations between rumen microbiota and growth performance and nutrient apparent digestibility

2.5 FBSG对育肥后期荷斯坦公牛瘤胃代谢物组成的影响

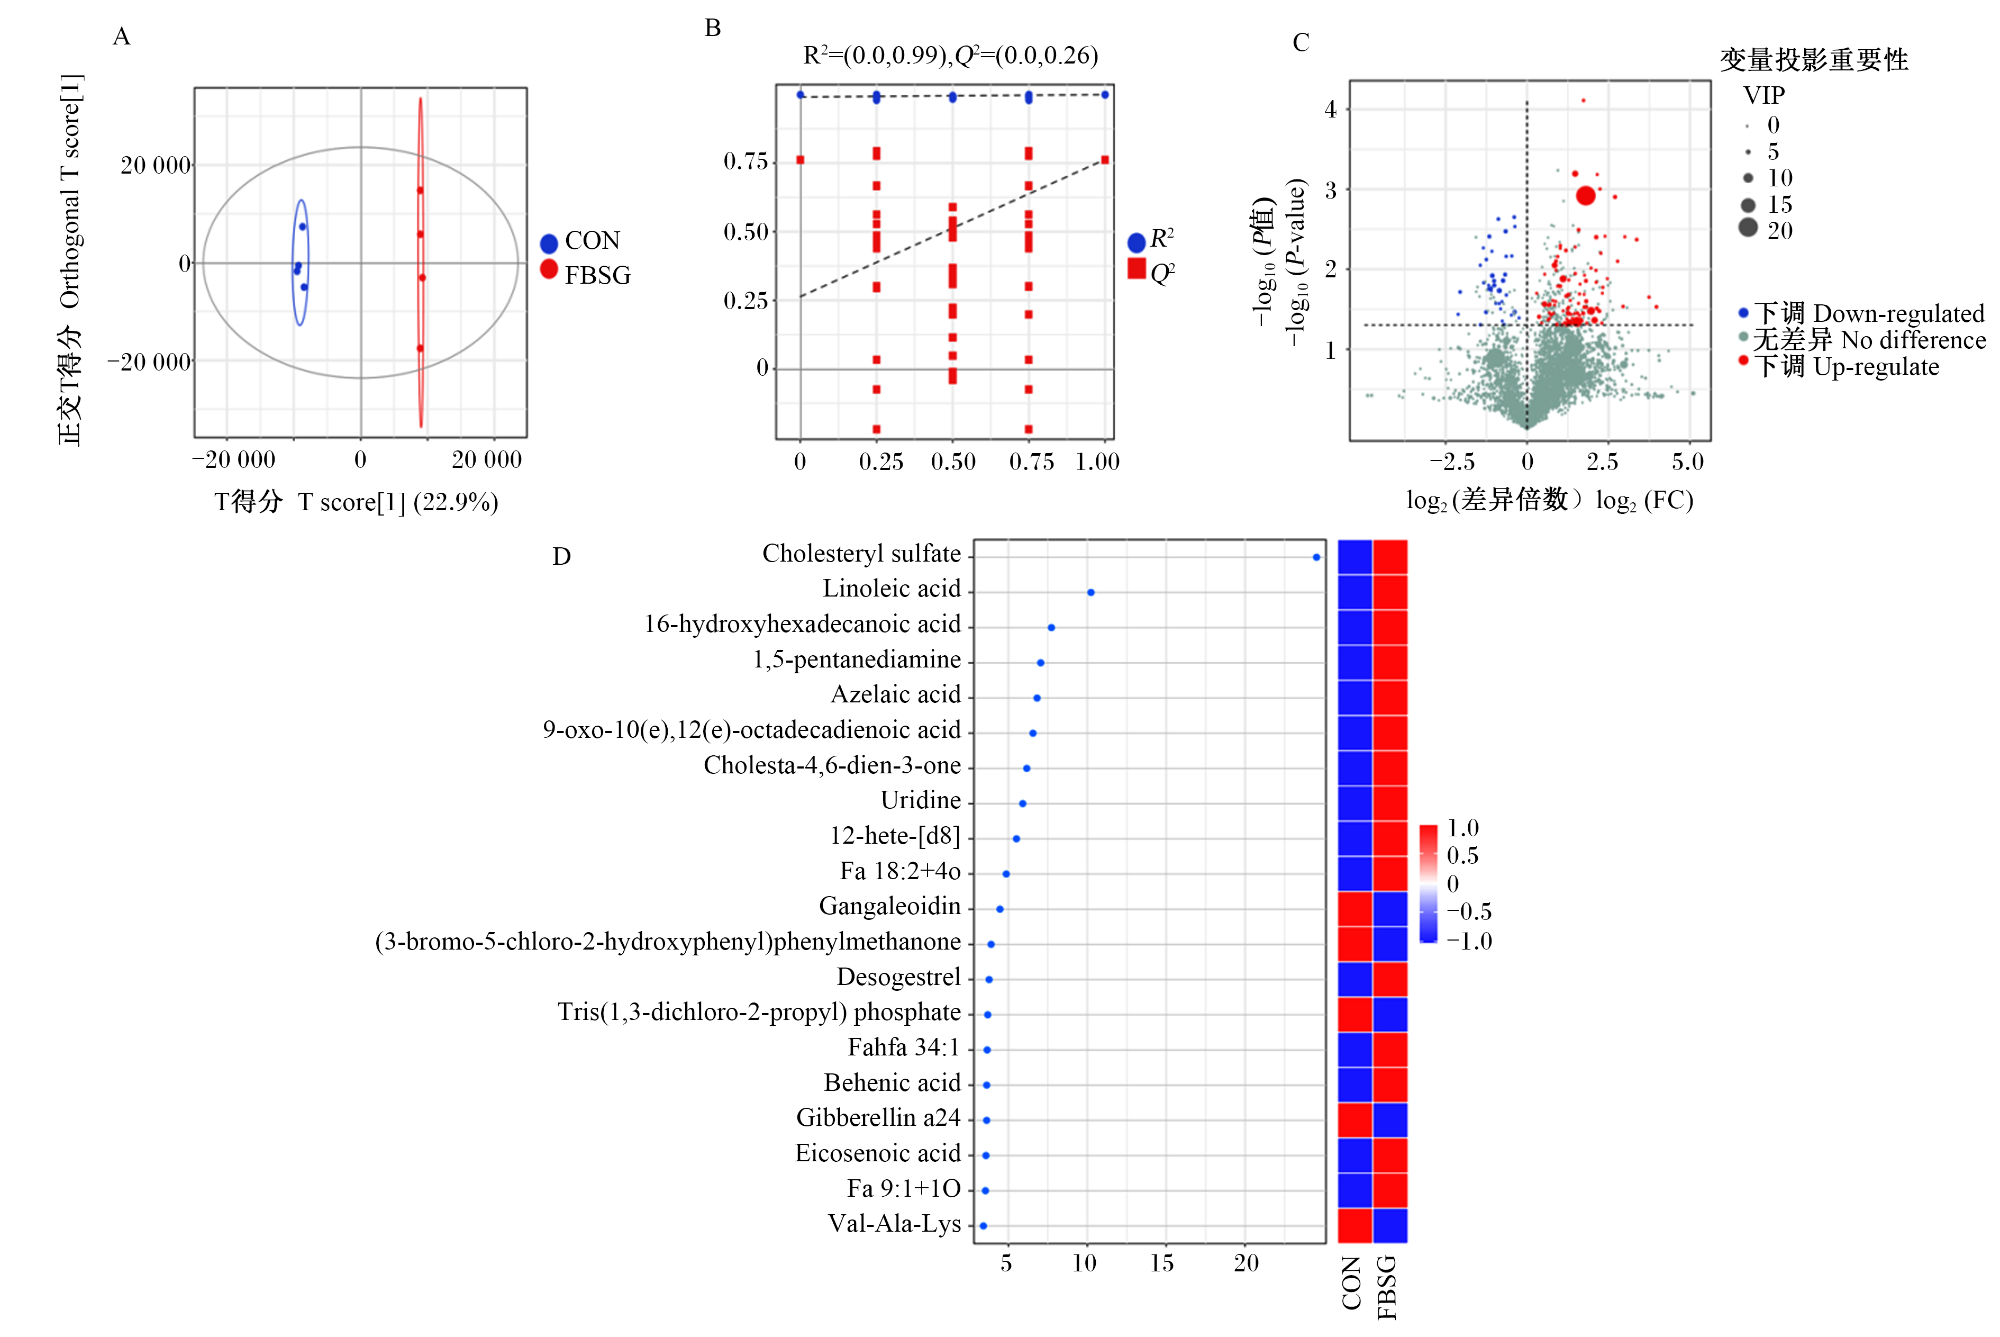
在正、负离子混合模式下,CON组和FBSG组样本均位于95%置信区间内,且发生明显聚类,表明2组瘤胃代谢物具有明显差异(图7-A)。OPLS-DA置换检验结果表明(图7-B),模型验证参数R2值均高于Q2值,数据表现良好,不存在过拟合现象,说明原模型对2组样本的区分能够较好地解释和预测。综合以上结果表明,该模型质量高,差异代谢物筛选可靠性强。
图7 瘤胃代谢物的差异表达

Cholesteryl sulfate:硫酸胆固醇;Linoleic acid:亚油酸;16-hydroxyhexadecanoic acid:16-羟基棕榈酸;1,5-pentanediamine:1,5-戊二胺;Azelaic acid:壬二酸;9-oxo-10(e),12(e)-octadecadienoic acid:9-氧代-10(e),12(e)-十八碳二烯酸;Cholesta-4,6-dien-3-one:4,6-胆固醇二烯-3-酮;Uridine:尿苷;12-hete-[d8]:12-羟基二十碳四烯酸-d8;Fa 18∶2+4o:十八碳二烯酸四氧化衍生物;Gangaleoidin:节枝定;(3-bromo-5-chloro-2-hydroxyphenyl)phenylmethanone:(3-溴-5-氯-2-羟基苯基)苯基甲酮;Desogestrel:去氧孕烯;Tris(1,3-dichloro-2-propyl) phosphate:三(1,3-二氯-2-丙基)磷酸酯;Fahfa 34∶1:羟基脂肪酸酯34∶1;Behenic acid:山嵛酸;Gibberellin a24:赤霉素a24;Eicosenoic acid:二十碳烯酸;Fa 9∶1+1O:9-单不饱和脂肪酸羟基衍生物;Val-Ala-Lys:缬氨酰-丙氨酰-赖氨酸。

A:OPLS-DA分析模型得分图;B:OPLS-DA置换检验图;C:差异代谢物火山图;D:差异代谢物VIP图(前20)。A: score graph of OPLS-DA analysis model; B: OPLS-DA permutation test diagram; C: volcano map of differential metabolite; D: differential metabolites VIP plot (top 20).

Fig.7 Differential expression of rumen metabolites

根据OPLS-DA模型中VIP>1、P<0.05的标准筛选瘤胃差异代谢物,CON组和FBSG组共筛选出129种差异代谢物,其中92种代谢物显著上调,37种代谢物显著下调(图7-C)。选取CON组和FBSG组瘤胃代谢物中VIP排名前20的差异代谢物进行可视化分析(图7-D),与CON组相比,FBSG组的瘤胃中硫酸胆固醇、亚油酸、16-羟基棕榈酸、1,5-戊二胺、壬二酸、9-氧代-10(e),12(e)-十八碳二烯酸、4,6-胆固醇二烯-3-酮、尿苷、12-羟基二十碳四烯酸-d8、十八碳二烯酸四氧化衍生物、去氧孕烯、羟基脂肪酸酯34∶1、山嵛酸、二十碳烯酸和9-单不饱和脂肪酸羟基衍生物等差异代谢物显著上调(P<0.05),节枝定、(3-溴-5-氯-2-羟基苯基)苯基甲酮、三(1,3-二氯-2-丙基)磷酸酯、赤霉素a24和缬氨酰-丙氨酰-赖氨酸等差异代谢物显著下调(P<0.05)。
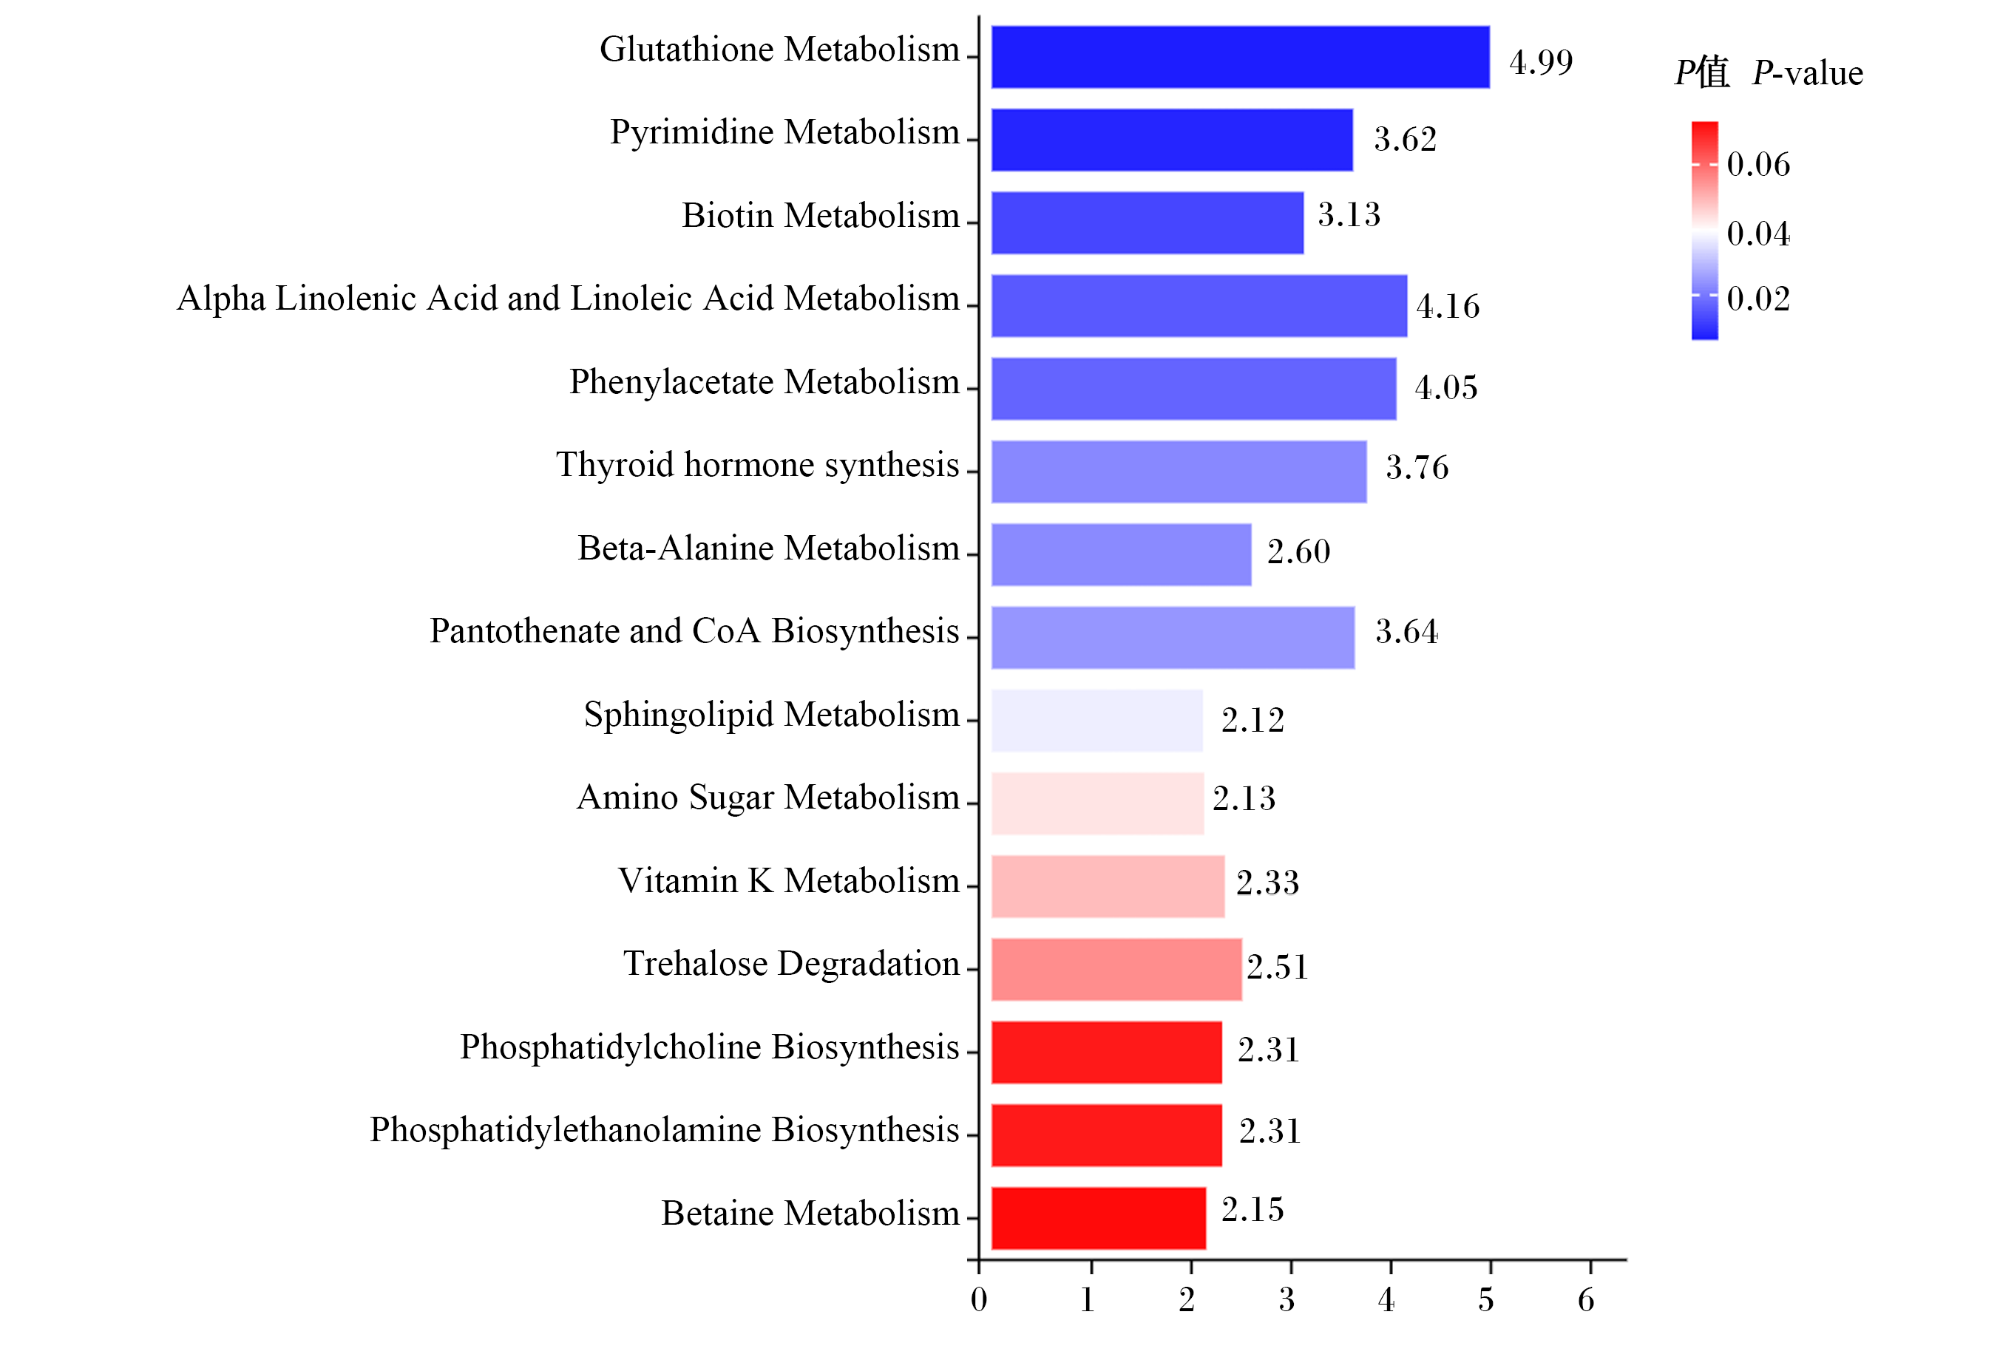
图8可知,代谢物集富集分析(metabolite set enrichment analysis,MSEA)结果显示,CON组和FBSG组之间的谷胱甘肽代谢、嘧啶代谢、生物素代谢、α-亚麻酸和亚油酸代谢、苯乙酸盐代谢、甲状腺激素合成、β-丙氨酸代谢、泛酸和辅酶A生物合成以及鞘脂代谢通路共9个代谢通路发生显著变化(P<0.05)。其中,胞苷和尿苷富集在嘧啶代谢通路,生物素富集在生物素代谢通路,亚油酸富集在α-亚麻酸和亚油酸代谢通路。
图8 瘤胃MSEA显著通路富集图

横坐标为富集倍数,表示代谢通路中观测代谢数量/理论代谢物数量。不同颜色表示P值大小。The horizontal coordinate was the enrichment factor, representing the observed metabolic quantity/theoretical metabolite quantity in the metabolic pathway. Used different colors to represent the P-value size.

Glutathione Metabolism:谷胱甘肽代谢;Pyrimidine Metabolism:嘧啶代谢;Biotin Metabolism:生物素代谢;Alpha Linolenic Acid and Linoleic Acid Metabolism:α-亚麻酸和亚油酸代谢;Phenylacetate Metabolism:苯乙酸盐代谢;Thyroid hormone synthesis:甲状腺激素合成;Beta-Alanine Metabolism:β-丙氨酸代谢;Pantothenate and CoA Biosynthesis:泛酸和辅酶A生物合成;Sphingolipid Metabolism:鞘脂代谢;Amino Sugar Metabolism:氨基糖代谢;Vitamin K Metabolism:维生素K代谢;Trehalose Degradation:海藻糖代谢;Phosphatidylcholine Biosynthesis:磷脂酰胆碱生物合成;Phosphatidylethanolamine Biosynthesis:磷脂酰乙醇胺生物合成;Betaine Metabolism:甜菜碱代谢。

Fig.8 Significant pathway enrichment map of rumen MSEA

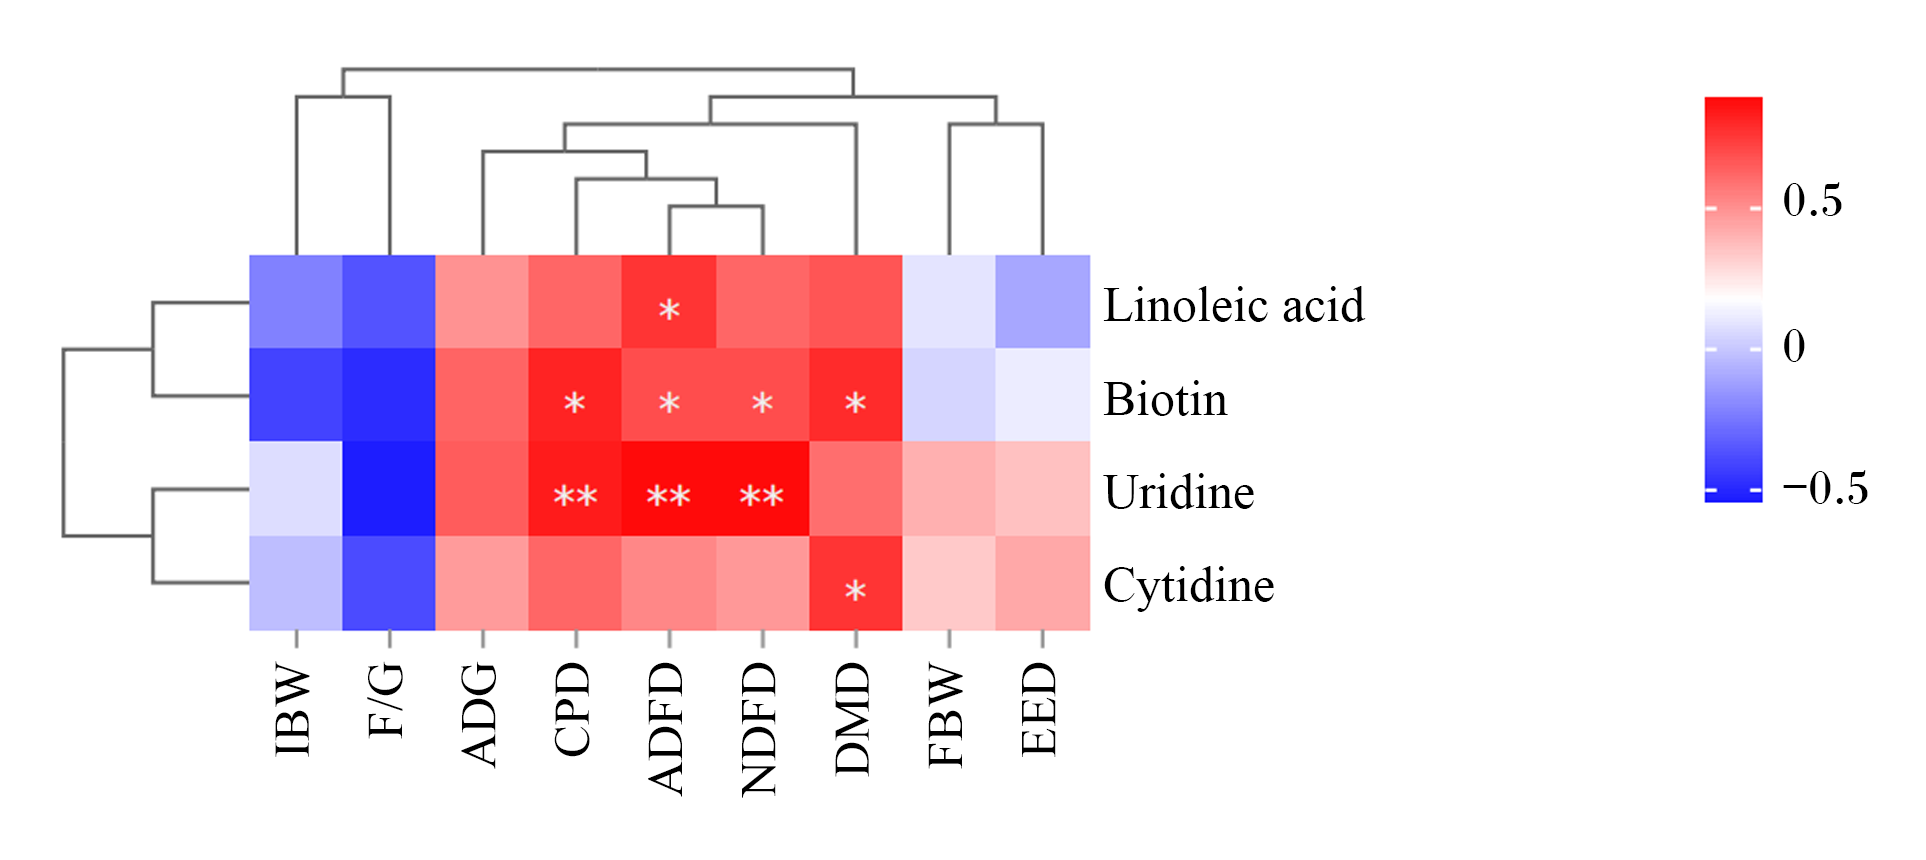
将瘤胃差异代谢物与生长性能和养分表观消化率进行Spearman相关性分析,由图9可知,瘤胃亚油酸含量与ADFD呈显著正相关(P<0.05),瘤胃生物素含量与CPD、ADFD、NDFD和DMD呈显著正相关(P<0.05),瘤胃尿苷含量与CPD、ADFD和NDFD含量呈极显著正相关(P<0.01),瘤胃胞苷含量与DMD呈显著正相关(P<0.05)。
图9 瘤胃差异代谢物与生长性能和养分表观消化率的关联热图

Linoleic acid:亚油酸;Biotin:生物素;Uridine:尿嘧啶;Cytidine:胞苷。

Fig.9 Heat map of correlations between rumen metabolites and growth performance and nutrient apparent digestibility

3 讨论

3.1 FBSG对育肥后期荷斯坦公牛生长性能和养分表观消化率的影响

生长性能是反映牧场经济效益和动物健康水平的核心指标,提高ADG和降低F/G尤为重要。本试验结果表明,FBSG提高了育肥后期荷斯坦公牛的DMI和ADG,降低了F/G,说明FBSG通过提高DMI增强机体营养摄入与能量供给,从而在促进育肥后期荷斯坦公牛生长方面发挥积极作用,这与FBSG独特的发酵特性及养分组成密切相关。发酵过程中产生的酯类、醇类和酚类等挥发性风味物质提高了啤酒糟的香气复杂度和适口性[3],激活多巴胺奖赏回路,激发采食动机和欲望[9],酶菌协同发酵还有利于促进木质素-碳水化合物分解、纤维素部分脱结晶化以及高度多孔微海绵结构形成,提高啤酒糟的可降解性和营养可利用度[10],这是提升育肥后期荷斯坦公牛DMI的核心生理基础。此外,FBSG中的多肽、游离氨基酸、有机酸等小分子活性物质可直接被机体吸收利用,为育肥后期荷斯坦公牛体重快速增长、肌肉与脂肪沉积提供高效能量供给,这是ADG提高的主要原因[11]
本试验结果表明,FBSG提高了育肥后期荷斯坦公牛的DMD、EED、ADFD和NDFD,表明FBSG对育肥后期荷斯坦公牛的碳水化合物与脂肪代谢具有促进作用。FBSG可能通过提高瘤胃纤维降解菌的群落结构和活性,增强其对结构性碳水化合物的降解能力,从而促进育肥后期荷斯坦公牛的养分利用效率。纤维降解菌及其分泌的植物细胞壁多糖降解酶协同[12]加速断裂纤维素β-1,4糖苷键和半纤维素支链结构,破坏纤维基质致密空间构象,解除纤维成分间的相互缠绕与阻碍,有效提升粗纤维表观消化率[13]。此外,纤维降解菌通过破坏脂肪与纤维的复合结构,使镶嵌于纤维基质内部的包裹态脂肪释放为游离态,促进脂肪乳化形成粒径更小的脂肪微滴,扩大脂肪酶与底物的接触面积,提升脂肪降解效率。

3.2 FBSG对育肥后期荷斯坦公牛瘤胃发酵参数和微生物组成的影响

本试验中,2组的瘤胃pH均在正常范围内,表明FBSG未对瘤胃内环境产生不良影响;FBSG组的瘤胃NH3-N含量极显著高于CON组,表明FBSG可能通过微生物代谢分泌的蛋白酶将其自身含有的大分子蛋白质降解为肽类和氨基酸,为微生物蛋白(MCP)合成提供充足的氮源,进而提升饲粮中氮利用率;FBSG组的瘤胃TVFA、乙酸、丙酸和丁酸含量显著或极显著高于CON组,乙酸/丙酸极显著低于CON组,表明FBSG可将瘤胃发酵模式转向为丙酸型发酵,使更多发酵产物经肝脏糖异生转化为葡萄糖或进入三羧酸循环供能,更高效地满足育肥后期荷斯坦公牛的能量需求[14]。丁酸作为瘤胃上皮细胞重要的能量物质,可通过抑制炎症、平衡营养代谢和优化微生物群落功能促进胃肠道发育[15],最终提高育肥后期荷斯坦公牛的生长性能和粗纤维利用率。
本试验中,2组的瘤胃微生物α多样性指数均无显著差异,表明FBSG并未改变瘤胃微生物群落的物种丰富度和均匀度,反映出其可通过自身稳态调节机制适应饲粮底物的变化。本试验得出芽孢杆菌门、变形菌门和拟杆菌门为育肥后期荷斯坦公牛的瘤胃优势菌门,符合反刍动物瘤胃微生物的典型结构特征[16];FBSG组的瘤胃浮酶菌门、绿弯菌门、疣微菌门等7种菌门的相对丰度显著高于CON组。浮霉菌门成员具备降解包括木质纤维素在内的复杂碳水化合物的多功能酶系统[17],可通过独特的厌氧发酵将多糖转化为VFA,与本试验FBSG组的VFA含量及粗纤维表观消化率提高的结果一致。研究发现,饲喂发酵白酒糟可显著降低西威牛瘤胃广古菌门相对丰度,提高绿弯菌门相对丰度,表明发酵白酒糟能够增强瘤胃内甲烷氧化,降低甲烷排放造成的能量损失[18]。疣微菌门则通过“基石物种”效应或代谢互补机制优化瘤胃内复杂多糖的高效降解[19],与其他优势菌群协同增强荷斯坦公牛对粗纤维的消化吸收。解琥珀酸菌属可将琥珀酸高效转化为丙酸,从而解除琥珀酸积累对纤维降解菌的代谢抑制,强化“粗纤维-琥珀酸-丙酸”代谢途径。本试验中,瘤胃解琥珀酸菌属相对丰度与NDFD和ADFD呈正相关,表明其可能与纤维降解菌协同优化瘤胃发酵模式,提高整个瘤胃微生物群落的粗纤维转化效率。聚乙酸菌属隶属芽孢杆菌门中的毛螺菌科,可通过伍德-伦德格伦途径将氢气和电子导向乙酸生成[20],使饲粮能量更多地以VFA形式储存。因此,FBSG组的瘤胃中聚乙酸菌属可能与解琥珀酸菌属协同强化纤维底物降解,调控瘤胃氢代谢平衡及优化能量供给效率,提升饲粮粗纤维降解效率,增强机体养分吸收能力。

3.3 FBSG对育肥后期荷斯坦公牛瘤胃代谢物组成的影响

本试验中,FBSG组的瘤胃中胞苷和尿苷含量上调,且与部分养分表观消化率呈显著或极显著正相关,表明宿主养分吸收能力增强为生长性能的提升提供了重要的营养支持。嘧啶及其衍生物参与RNA合成、跨膜信号转导、能量代谢与物质合成等重要生理过程[21]。胞苷和尿苷进入细胞后,分别在胞苷激酶和尿苷激酶的催化下生成胞苷三磷酸(cytidine triphosphate,CTP)和尿苷三磷酸(uridine triphosphate,UTP),CTP直接激活胆碱或乙醇胺,进而与甘油二酯结合,促进CDP-胆碱途径中磷脂酰胆碱(phosphatidylcholine,PC)和磷脂酰乙醇胺(phosphatidylethanolamine,PE)合成基因的表达[22],PC和PE的合成可为瘤胃细胞膜构建及损伤修复提供物质基础;而UTP则作为关键底物驱动硫胺素焦磷酸激酶1的磷酸化,生成的硫胺素焦磷酸通过增强丙酮酸脱氢酶的活性,促进丙酮酸氧化分解及三羧酸循环高效转运,提高能量利用效率[23]。研究表明,饲喂20%益生菌发酵酒糟可显著提高育肥牛瘤胃PC和PE含量[24],且本试验与饲喂益生菌发酵酒糟的西门塔尔杂交牛瘤胃嘧啶代谢通路显著富集的研究结果[5]一致,进一步证明了嘧啶代谢在调控反刍动物瘤胃功能和养分消化吸收中的积极作用。此外,本试验中FBSG组的瘤胃中生物素含量上调,且与CPD、ADFD、NDFD和DMD呈显著正相关。生物素可通过扩展纤维降解菌的生态位与互作网络,驱动这类功能菌群分泌糖苷水解酶,降解饲粮结构性碳水化合物[25],为机体生长提供充足的营养底物,表现为ADFD和NDFD提高。因此,瘤胃嘧啶代谢和生物素代谢通路可协同优化饲粮养分的消化、吸收与利用过程,间接改善育肥后期荷斯坦公牛的生长性能。这些代谢物和代谢通路的变化共同揭示了FBSG通过改变瘤胃代谢进而提高育肥后期荷斯坦公牛生长性能的调控机制。

4 结论

FBSG替代基础饲粮中10%全株玉米青贮可通过提高养分表观消化率以及改善瘤胃发酵参数、微生物组成和代谢物组成,进而提高育肥后期荷斯坦公牛的生长性能。
[1]
OYEDEJI A B, WU J P. Food-based uses of brewers spent grains:current applications and future possibilities[J]. Food Bioscience, 2023, 54:102774.

DOI

[2]
ALONSO-RIAÑO P, RAMOS C, TRIGUEROS E, et al. Study of subcritical water scale-up from laboratory to pilot system for brewer’s spent grain valorization[J]. Industrial Crops and Products, 2023, 191(Pt A):115927.

[3]
CHEN J M, WANG Z, SHEN X J, et al. Solid-state fermentation through synthetic microbiome:an effective strategy for converting Chinese distillers’ grains into functional protein feed[J]. International Journal of Food Microbiology, 2025, 435:111154.

DOI

[4]
曹广. 发酵酒糟对育肥牦牛生产性能和瘤胃菌群组成的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2020.

CAO G.Effects of fermented distiller’s grains on the production performance and rumen bacteria composition of finishing yaks[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2020. (in Chinese)

[5]
MEI S H, HE G X, CHEN Z, et al. Probiotic-fermented distillers grain alters the rumen microbiome,metabolome,and enzyme activity,enhancing the immune status of finishing cattle[J]. Animals, 2023, 13(24):3774.

DOI

[6]
ZHU M M, ZHANG T T, XU D H, et al. Impact of fermented wine lees on gut microbiota and metabolic responses in Guanling crossbred cattle[J]. BMC Microbiology, 2024, 24(1):421.

DOI

[7]
LIU H, YANG G, DEGEN A, et al. Effect of feed level and supplementary rumen protected lysine and methionine on growth performance,rumen fermentation,blood metabolites and nitrogen balance in growing Tan lambs fed low protein diets[J]. Animal Feed Science and Technology, 2021, 279:115024.

DOI

[8]
REN Y, YU G, SHI C P, et al. Majorbio cloud:a one-stop,comprehensive bioinformatic platform for multiomics analyses[J]. iMeta, 2022, 1(2):e12.

DOI

[9]
JIN R J, SUN S B, HU Y, et al. Neuropeptides modulate feeding via the dopamine reward pathway[J]. Neurochemical Research, 2023, 48(9):2622-2643.

DOI

[10]
LIU K X, XIE Z J, HUANG Y, et al. Brewers’ spent grain reborn via cellulose-xylanase hydrolysis and Lactobacillus acidophilus fermentation and their application in bread[J]. Innovative Food Science & Emerging Technologies, 2026, 107:104352.

[11]
王剑. 六种食用担子菌发酵白酒糟筛选及其对关岭牛生产性能的影响[D]. 硕士学位论文. 贵阳: 贵州大学, 2023.

WANG J.Screening of six edible basidiomycetes for fermented distillers’ grains and their effects on the production performance of Guanling cattle[D].Master’s Thesis. Guiyang: Guizhou University, 2023. (in Chinese)

[12]
MENDONÇA M, BARROCA M, COLLINS T. Endo-1,4-β-xylanase-containing glycoside hydrolase families:characteristics,singularities and similarities[J]. Biotechnology Advances, 2023, 65:108148.

DOI

[13]
徐倩, 张富, 吴贤锋, 等. 饲粮发酵啤酒糟水平对闽东山羊生长性能、消化代谢、血清生化指标及瘤胃发酵的影响[J]. 动物营养学报, 2024, 36(1):416-427.

DOI

XU Q, ZHANG F, WU X F, et al. Effects of dietary fermented brewer’s grains level on growth performance,digestion and metabolism,serum biochemical indices and rumen fermentation of Mindong goats[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):416-427. (in Chinese)

[14]
WANG X, LI F, ZHANG N N, et al. Effects of supplementing a yeast culture in a pelleted total mixed ration on fiber degradation,fermentation parameters,and the bacterial community in the rumen of sheep[J]. Animal Feed Science and Technology, 2023, 296:115565.

DOI

[15]
ZHONG H Y, YU W J, WANG M, et al. Sodium butyrate promotes gastrointestinal development of preweaning bull calves via inhibiting inflammation,balancing nutrient metabolism,and optimizing microbial community functions[J]. Animal Nutrition, 2023, 14:88-100.

DOI

[16]
SONG C, ZHANG T T, XU D H, et al. Impact of feeding dried distillers’ grains with solubles diet on microbiome and metabolome of ruminal and cecal contents in Guanling yellow cattle[J]. Frontiers in Microbiology, 2023, 14:1171563.

DOI

[17]
KLIMEK D, HEROLD M, CALUSINSKA M. Comparative genomic analysis of planctomycetota potential for polysaccharide degradation identifies biotechnologically relevant microbes[J]. BMC Genomics, 2024, 25(1):523.

DOI PMID

[18]
禹光美. 发酵酒糟对肉牛免疫相关指标及肠道菌群影响研究[D]. 硕士学位论文. 贵阳: 贵州大学, 2023.

YU G M.Study on the effects of fermented distillers’ grains on immune-related indicators and intestinal flora of beef cattle[D].Master’s Thesis. Guiyang: Guizhou University, 2023. (in Chinese)

[19]
AMIT G, BASHAN A. Top-down identification of keystone taxa in the microbiome[J]. Nature Communications, 2023, 14(1):3951.

DOI PMID

[20]
LI Q S, WANG R, ZHOU X, et al. Metabolic versatility enables acetogens to colonize ruminants with diet-driven niche partitioning[J]. The ISME Journal, 2025, 19(1):wraf183.

[21]
DENG Y F, WANG Z V, GORDILLO R, et al. An adipo-biliary-uridine axis that regulates energy homeostasis[J]. Science, 2017, 355(6330):eaaf5375.

DOI

[22]
ZHU Y B, TONG X M, XUE J Y, et al. Phospholipid biosynthesis modulates nucleotide metabolism and reductive capacity[J]. Nature Chemical Biology, 2025, 21(1):35-46.

DOI

[23]
SAHU U, VILLA E, RECZEK C R, et al. Pyrimidines maintain mitochondrial pyruvate oxidation to support de novo lipogenesis[J]. Science, 2024, 383(6690):1484-1492.

DOI

[24]
ZHANG R, MEI S H, HE G X, et al. Feeding probiotics-fermented distiller’s grains diets increases rumen enzyme activities and glycerophospholipid levels in finishing cattle by modulating rumen microbiota[J]. Microbiome, 2025, 13(1):137.

DOI

[25]
LIU L, TIAN C F, WANG M X, et al. Mutualism between degraders and nondegraders stabilizes the function of a natural biopolymer-degrading community[J]. Proceedings of the National Academy of Sciences, 2025, 122(30):e2500664122.

DOI

文章导航

/