研究论文

包被钴胺素和钴胺素对奶牛泌乳性能、瘤胃发酵和血清指标的影响

  • 冯江 ,
  • 韩晨辉 ,
  • 徐垲琳 ,
  • 冯家欣 ,
  • 荆玉倩 ,
  • 王勇 ,
  • 孙楠 ,
  • 霍文婕 ,
  • 郭刚 ,
  • 刘强 , * ,
  • 王聪 , *
展开
  • 山西农业大学动物科学学院, 太谷 030801
* 刘 强,教授,博士生导师,E-mail: ;
王 聪,教授,博士生导师,E-mail:

冯 江(2000—),男,山西长治人,硕士研究生,从事反刍动物营养与饲料科学研究。E-mail:

Office editor: 田艳明

收稿日期: 2026-01-15

  网络出版日期: 2026-09-12

基金资助

国家自然科学基金项目(32472923)

山西省现代农业牛产业技术体系建设项目(2026CYJSTX13)

Effects of Coated Cobalamin and Cobalamin on Lactation Performance, Rumen Fermentation and Serum Indices in Dairy Cows

  • FENG Jiang ,
  • HAN Chenhui ,
  • XU Kailin ,
  • FENG Jiaxin ,
  • JING Yuqian ,
  • WANG Yong ,
  • SUN Nan ,
  • HUO Wenjie ,
  • GUO Gang ,
  • LIU Qiang , * ,
  • WANG Cong , *
Expand
  • College of Animal Science, Shanxi Agricultural University, Taigu 030801, China
* LIU Qiang, professor, E-mail: ;
WANG Cong, professor, E-mail:

Received date: 2026-01-15

  Online published: 2026-09-12

摘要

本试验旨在研究包被钴胺素(CCA)和钴胺素(CA)对泌乳早期奶牛泌乳性能、瘤胃发酵和血清指标的影响。选取胎次(2胎)、产奶量[(41.28±6.25) kg]和泌乳天数[(42.70±10.32) d]相近的荷斯坦奶牛48头,随机分为4组,每组12个重复,每个重复1头。对照组(CON组)饲喂基础饲粮,试验组分别在饲喂基础饲粮的基础上补充6.00 g/d CCA(含0.2% CA,CCA组)、6.00 mg/d CA(LCA组)和12.00 mg/d CA(HCA组)。预试期10 d,正试期60 d。结果表明:1)CCA组4%乳脂校正乳(FCM)产量、乳脂产量和饲料效率(FE)显著高于CON组、LCA组和HCA组(P<0.05),乳蛋白产量和乳糖产量显著高于CON组和HCA组(P<0.05)。2)CCA组干物质(DM)和有机物(OM)表观消化率显著高于CON组、LCA组和HCA组(P<0.05);与CON组相比,CCA组、LCA组和HCA组粗蛋白质(CP)和中性洗涤纤维(NDF)表观消化率显著提高(P<0.05)。3)与CON组相比,LCA组和HCA组瘤胃pH显著降低(P<0.05);CCA组、LCA组和HCA组瘤胃总挥发性脂肪酸(TVFA)含量和丙酸比例显著提高(P<0.05),瘤胃乙酸/丙酸值显著降低(P<0.05)。4)与CON组相比,LCA组和HCA组瘤胃菌群Shannon指数显著提高(P<0.05);CCA组、LCA组和HCA组瘤胃拟杆菌门、纤维杆菌门和普雷沃氏菌属相对丰度显著提高(P<0.05),瘤胃厚壁菌门相对丰度以及厚壁菌门/拟杆菌门值显著降低(P<0.05)。5)CCA组血清白蛋白含量、超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性以及CA含量显著高于CON组、LCA组和HCA组(P<0.05),血清丙二醛含量显著低于CON组和HCA组(P<0.05)。综上所述,泌乳早期奶牛补充CCA和CA能够提高CP和NDF表观消化率,瘤胃TVFA含量和丙酸比例,以及瘤胃拟杆菌门、纤维杆菌门和普雷沃氏菌属相对丰度;补充CCA还能够提高4% FCM产量、乳成分产量和FE,DM和OM表观消化率,以及血清SOD、GSH-Px活性和CA含量。

本文引用格式

冯江 , 韩晨辉 , 徐垲琳 , 冯家欣 , 荆玉倩 , 王勇 , 孙楠 , 霍文婕 , 郭刚 , 刘强 , 王聪 . 包被钴胺素和钴胺素对奶牛泌乳性能、瘤胃发酵和血清指标的影响[J]. 动物营养学报, 2026 , 38(9) : 6761 -6771 . DOI: 10.12418/CJAN2026.541

Abstract

This experiment was conducted to investigate the effects of coated cobalamin (CCA) and cobalamin (CA) on lactation performance, rumen fermentation and serum indices in early-lactation dairy cows. Forty-eight Holstein dairy cows with similar parity (2 parities), milk yield [(41.28±6.25) kg] and lactation days [(42.70±10.32) d] were randomly assigned to 4 groups, with 12 replicates per group and 1 cow per replicate. Cows in the control group (CON group) were fed a basal diet, while those in the experimental groups were fed the basal diets supplemented with 6.00 g/d CCA (containing 0.2% CA, CCA group), 6.00 mg/d CA (LCA group) and 12.00 mg/d CA (HCA group), respectively. The pre-trial period lasted for 10 days, and the formal trial period lasted for 60 days. The results showed as follows: 1) the 4% fat-corrected milk (FCM) yield, milk fat yield and feed efficiency (FE) in CCA group were significantly higher than those in CON, LCA and HCA groups (P<0.05), and the milk protein yield and lactose yield were significantly higher than those in CON and HCA groups (P<0.05). 2) The apparent digestibilities of dry matter (DM) and organic matter (OM) in CCA group were significantly higher than those in CON, LCA and HCA groups (P<0.05); compared with CON group, the apparent digestibilities of crude protein (CP) and neutral detergent fiber (NDF) in CCA, LCA and HCA groups were significantly increased (P<0.05). 3) Compared with CON group, the rumen pH in LCA and HCA groups was significantly decreased (P<0.05); the rumen total volatile fatty acid (TVFA) content and propionate proportion in CCA, LCA and HCA groups were significantly increased (P<0.05), and the rumen acetate to propionate ratio was significantly decreased (P<0.05). 4) Compared with CON group, the Shannon index of rumen microbiota in LCA and HCA groups was significantly increased (P<0.05); the relative abundances of rumen Bacteroidota, Fibrobacterota and Prevotella in CCA, LCA and HCA groups were significantly increased (P<0.05), while the rumen Firmicutes relative abundance and Firmicutes to Bacteroidota ratio were significantly decreased (P<0.05). 5) The serum albumin content, superoxide dismutase (SOD) and glutathione peroxidase (GSH-Px) activities, and CA content in CCA group were significantly higher than those in CON, LCA and HCA groups (P<0.05), and the serum malondialdehyde content was significantly lower than that in CON and HCA groups (P<0.05). In conclusion, the supplementation with CCA and CA in early-lactation dairy cows can improve the apparent digestibilities of CP and NDF, rumen TVFA content and propionate proportion, and the relative abundances of rumen Bacteroidota, Fibrobacterota and Prevotella; the supplementation with CCA can also increase 4% FCM yield, milk component yields, FE, apparent digestibilities of DM and OM, and serum SOD and GSH-Px activities and CA content.

钴胺素(cobalamin,CA)通过一碳循环参与蛋氨酸、肌酸和谷胱甘肽的合成,是奶牛乳合成、能量利用以及免疫和抗氧化过程的必需因子,同时也是奶牛肝脏糖异生代谢以及瘤胃丙酸生成过程限速酶的辅酶[1-2]。研究发现,饲粮中的钴只有约4%能被瘤胃微生物用于合成CA[3]。在饲粮含钴0.20 mg/kg DM[NASEM(2021)[4]推荐量]的条件下,补充钴对奶牛泌乳性能无显著影响[4];每周肌肉注射10 mg CA能显著提高奶牛能量校正乳产量[5-6],但该方式不能发挥CA对奶牛瘤胃代谢的调控作用。体外试验证明,CA参与微生物DNA、乙酰辅酶A和丙酰辅酶A的合成[7],是瘤胃普雷沃氏菌属(Prevotella)细菌的必需营养素[8];发酵液中添加CA能刺激普雷沃氏菌科(Prevotellaceae)菌群的生长[9]。由于瘤胃微生物能将CA降解为无机钴,饲粮中添加的CA约80%在瘤胃中被微生物利用或降解,反刍动物生产中推荐使用包被钴胺素(coated cobalamin,CCA)添加剂[3,10-11]。研究发现,补充CCA能够显著提高奶牛产奶量、饲料效率(FE)、瘤胃总挥发性脂肪酸(TVFA)含量以及血清CA含量[11-12]。瘤胃挥发性脂肪酸(VFA)是乳脂和乳糖合成的前体物,能满足奶牛约70%的能量需求[4]。CCA对瘤胃发酵的调控是奶牛泌乳性能和FE提高的重要因素[11-12]。与直接补充CA相比,补充CCA减少了CA在瘤胃中的释放速度和释放量,可能会影响瘤胃VFA的产生和菌群结构。但是,奶牛瘤胃体外发酵试验表明,随着CA添加水平的提高,TVFA含量呈线性降低[13]。因此,需要探究不同水平CA对瘤胃TVFA含量的影响。基于此,本试验通过比较CCA和CA对泌乳早期奶牛产奶性能、养分消化、瘤胃发酵参数及菌群组成以及血清指标的影响,以明晰CA对奶牛瘤胃代谢的调控特点,同时确定奶牛生产中CA的补充方式。

1 材料与方法

1.1 试验材料

试验用CA和CCA均为市售产品,其中CA为饲料级,纯度98.00%;CCA由0.20% CA、17.50%棕榈脂肪、16.50%硬脂酸钙、48.60%二氧化硅和17.20%氢化椰子油组成。采用尼龙袋法,通过装有瘤胃和十二指肠瘘管的奶牛测得CCA中的CA在瘤胃和肠道的释放率分别为24.84%和70.52%。

1.2 试验设计

本试验遵照山西农业大学实验动物伦理委员会的规定(伦理批准编号:SAXU-EAW-2024C0.LN.011030224),在山西忻州银山湖奶牛养殖有限公司开展。选取胎次(2胎)、产奶量[(41.28±6.25) kg]和泌乳天数[(42.70±10.32) d]相近的荷斯坦奶牛48头,依据随机区组设计分为4组,每组12个重复,每个重复1头。对照组(CON组)饲喂基础饲粮,试验组分别在饲喂基础饲粮的基础上补充6.00 g/d CCA(CCA组)、6.00 mg/d CA(LCA组)和12.00 mg/d CA(HCA组);各组奶牛瘤胃中CA补充量分别为0、2.98、6.00和12.00 mg/d。CCA和CA添加水平依据前期试验结果[11]确定。预试期10 d,正试期60 d。奶牛基础饲粮依据NASEM(2021)[4]配制,其组成及营养水平见表1。其中,饲粮泌乳净能(NEL)依据公式NEL=[0.024 5×饲粮可消化总养分(%)-0.12]×4.184 MJ/kg[4]计算,钴含量依据GB/T 13884—2018[14]中方法测定,其余各养分含量依据AOAC(2006)[15]的方法测定。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)

项目Items 含量Content
原料Ingredients
玉米青贮Corn silage 26.00
苜蓿干草Alfalfa hay 13.00
燕麦草Oat hay 11.00
玉米粒Corn grain 24.00
麸皮Wheat bran 6.00
豆粕Soybean meal 10.60
菜籽粕Rapeseed meal 2.50
棉籽粕Cottonseed meal 5.00
碳酸氢钙Ca(HCO3)2 0.60
食盐NaCl 0.50
磷酸氢钙CaHPO4 0.30
预混料Premix1) 0.50
合计Total 100.00
营养水平Nutrient levels2)
有机物OM 94.50
粗蛋白质CP 17.20
粗脂肪EE 3.20
中性洗涤纤维NDF 31.10
酸性洗涤纤维ADF 19.30
钙Ca 0.73
磷P 0.48
钴Co/(mg/kg) 0.21
泌乳净能NEL/(MJ/kg) 6.63

1)每千克预混料含有 One kilogram of the premix contained the following:VA 820 000 IU,VD 300 000 IU,VE 10 000 IU,Fe 20 000 mg,Cu 1 600 mg,Mn 8 000 mg,Zn 7 500 mg,I 120 mg,Se 60 mg,Co 20 mg。

2)NEL为计算值,其他营养水平为实测值。NEL was a calculated value, while the other nutrient levels were measured values.

1.3 饲养管理

试验牛饲养于同一圈舍,不同组之间用铁栏杆隔开,试验期间自由采食和饮水,每天饲喂2次(07:00和15:00各1次),挤奶3次(06:00、14:00和22:00各1次)。早晨投料前,所有试验牛上颈夹,将CCA和CA与约2 kg饲粮混匀,逐头牛进行饲喂。

1.4 样品采集及指标测定

1.4.1 采食量测定

试验期间,记录每头牛每天的投料量和剩料量;每隔10 d,采集基础饲粮样品以及每头奶牛的剩料样品,于-20 ℃保存。试验结束后,依据AOAC(2006)[15]的方法测定饲粮和剩料的干物质(DM)含量,计算奶牛的干物质采食量(DMI)。

1.4.2 奶样采集及乳成分测定

试验期间,记录每头牛每天的产奶量;每隔10 d,采集每头牛当天3次挤奶的奶样,依据重量比制成混合样。乳成分(乳脂、乳蛋白和乳糖)含量采用红外乳品分析仪(MK-120,Foss,丹麦)测定。

1.4.3 饲粮和粪样采集及养分表观消化率测定

正试期第57~59天,通过直肠采集每头牛粪便样品,每天4次(以8 h为间隔),每次约50 g。将每头牛的粪样按质量比制成混合样,烘干(65 ℃)后粉碎(1 mm)。饲粮和粪样中各养分含量依据AOAC(2006)[15]的方法测定,酸不溶灰分含量依据Van Keulen等[16]的方法测定。

1.4.4 瘤胃液样品采集及瘤胃发酵参数和菌群测定

正试期第60天,晨饲后3~4 h,使用胃管采集每头牛瘤胃液样品100~150 mL。先用便携式pH计[BPH-7100,贝尔分析仪器(大连)有限公司]测定瘤胃液pH。然后将瘤胃液用4层纱布过滤,一部分滤液保存于-20 ℃,用于氨态氮和VFA含量测定;另一部分保存于-80 ℃,用于菌群分析。
采用气相色谱仪[安捷伦科技(中国)有限公司]测定瘤胃液中VFA含量[15],采用分光光度计(TU-1901,青岛聚创世纪环保科技有限公司)测定瘤胃液中氨态氮含量[15],菌群分析(每组6头牛)采用16S高通量测序手段进行。

1.4.5 血液样品采集及血清指标测定

正试期第60天,晨饲后3~4 h,采集每头牛尾静脉血液10~15 mL,2 000×g离心15 min,分离血清保存于-20 ℃。采用酶标仪(DR200-Bn,山东博科医疗器械有限公司)测定血清葡萄糖、胰岛素(INS)、总蛋白、白蛋白、尿素氮、β-羟丁酸(BHB)、丙二醛(MDA)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)和CA含量或活性;采用分光光度计(TU-1901,青岛聚创世纪环保科技有限公司)测定血清游离脂肪酸(NEFA)含量。血清指标测定试剂盒购于上海酶联生物科技有限公司。

1.5 数据处理和统计分析

试验数据采用SAS 9.3软件进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较,结果数据以平均值和均值标准误(SEM)表示,差异显著性水平设定为P<0.05。

2 结果与分析

2.1 CCA和CA对奶牛泌乳性能的影响

表2可知,补充CCA和CA对奶牛DMI、产奶量、乳脂率和乳糖率无显著影响(P>0.05)。CCA组4%乳脂校正乳(FCM)产量、乳脂产量和FE显著高于CON组、LCA组和HCA组(P<0.05);同时,乳蛋白产量和乳糖产量显著高于CON组和HCA组(P<0.05)。此外,与CON组和HCA组相比,CCA组和LCA组乳蛋白率显著提高(P<0.05)。
表2 CCA和CA对奶牛泌乳性能的影响

Table 2 Effects of CCA and CA on lactation performance in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CCA LCA HCA
干物质采食量DMI/(kg/d) 25.68 25.75 25.56 25.77 0.436 0.622
产奶量Milk yield/(kg/d) 41.83 43.80 42.31 41.92 1.066 0.381
4%乳脂校正乳产量4% FCM yield/(kg/d) 45.40b 47.95a 45.86b 45.32b 0.857 0.043
乳脂产量Milk fat yield/(kg/d) 1.91b 2.03a 1.93b 1.90b 0.029 0.015
乳蛋白产量Milk protein yield/(kg/d) 1.33b 1.43a 1.37ab 1.34b 0.023 0.035
乳糖产量Lactose yield/(kg/d) 2.07b 2.19a 2.11ab 2.08b 0.036 0.010
乳脂率Milk fat ratio/% 4.57 4.63 4.56 4.54 0.049 0.644
乳蛋白率Milk protein ratio/% 3.17b 3.27a 3.23a 3.19b 0.024 0.046
乳糖率Lactose ratio/% 4.94 5.00 4.98 4.97 0.014 0.660
饲料效率FE 1.63b 1.70a 1.65b 1.63b 0.010 0.042

同行数据肩标不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 CCA和CA对奶牛养分表观消化率的影响

表3可知,CCA组DM和有机物(OM)表观消化率显著高于CON组、LCA组和HCA组(P<0.05)。与CON组相比,CCA组、LCA组和HCA组粗蛋白质(CP)和中性洗涤纤维(NDF)表观消化率显著提高(P<0.05)。补充CCA和CA对酸性洗涤纤维(ADF)表观消化率无显著影响(P>0.05)。
表3 CCA和CA对奶牛养分表观消化率的影响

Table 3 Effects of CCA and CA on nutrient apparent digestibility in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CCA LCA HCA
干物质DM 71.43b 73.55a 72.29b 72.01b 0.990 0.049
有机物OM 72.87b 75.18a 73.35b 72.20b 1.044 0.038
粗蛋白质CP 69.31b 73.39a 73.08a 74.14a 1.147 0.015
中性洗涤纤维NDF 48.54b 53.19a 52.17a 53.33a 1.295 0.011
酸性洗涤纤维ADF 45.37 46.21 46.86 46.12 1.362 0.298

2.3 CCA和CA对奶牛瘤胃发酵参数的影响

表4可知,与CON组和CCA组相比,LCA组和HCA组奶牛瘤胃pH显著降低(P<0.05)。与CON组相比,补充CCA和CA显著提高瘤胃TVFA含量以及丙酸和异丁酸比例(P<0.05),显著降低瘤胃乙酸/丙酸值(P<0.05),对瘤胃乙酸、戊酸和异戊酸比例以及氨态氮含量无显著影响(P>0.05)。
表4 CCA和CA对奶牛瘤胃发酵参数的影响

Table 4 Effects of CCA and CA on rumen fermentation parameters in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CCA LCA HCA
pH 6.42a 6.38a 6.24b 6.19b 0.069 0.017
总挥发性脂肪酸TVFA/(mmol/L) 138.09b 146.94a 150.87a 151.66a 3.791 0.030
乙酸Acetate/% 60.69 60.13 59.89 60.69 1.161 0.358
丙酸Propionate/% 21.82b 24.06a 24.84a 24.31a 1.032 0.017
丁酸Butyrate/% 12.00a 10.26b 9.65b 9.48b 0.784 0.033
戊酸Valerate/% 2.52 2.38 2.42 2.42 0.038 0.239
异丁酸Isobutyrate/% 1.22b 1.32a 1.38a 1.35a 0.022 0.035
异戊酸Isovalerate/% 1.01 1.08 1.09 1.02 0.034 0.408
乙酸/丙酸Acetate/propionate 2.78a 2.50b 2.41b 2.50b 0.103 0.023
氨态氮Ammonia-N/(mg/dL) 14.73 14.50 11.58 12.34 1.483 0.406

2.4 CCA和CA对奶牛瘤胃菌群的影响

2.4.1 瘤胃菌群多样性分析

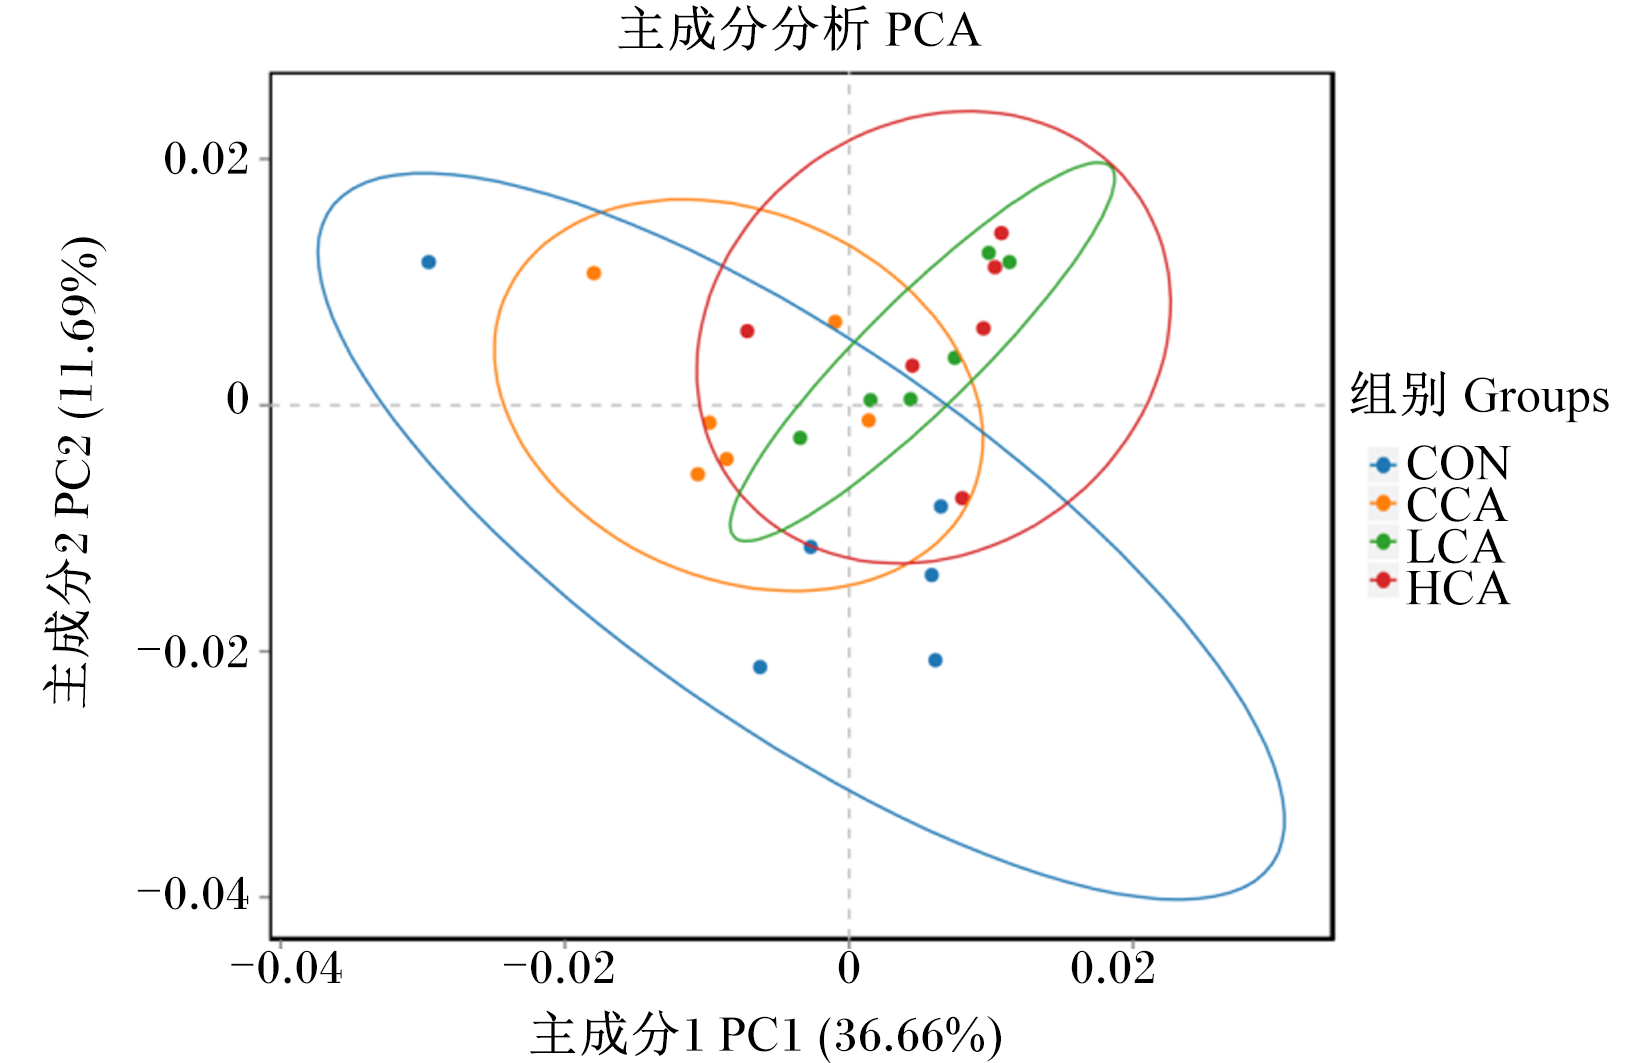
表5可知,奶牛瘤胃菌群测序平均覆盖度为0.998,且各组间无显著差异(P>0.05);同时,各组间Chao1指数、ACE指数、Simpson指数和PD-whole-tree指数无显著差异(P>0.05)。与CON组相比,LCA组和HCA组Shannon指数显著提高(P<0.05)。如图1所示,主成分分析(PCA)结果表明,不同组间瘤胃菌群存在明显分离,表明不同组间瘤胃菌群组成存在差异。
表5 CCA和CA对奶牛瘤胃菌群α多样性的影响

Table 5 Effects of CCA and CA on α diversity of rumen microbiota in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CCA LCA HCA
Chao1指数Chao1 index 1 858.61 2 270.07 2 037.54 2 246.59 170.06 0.319
ACE指数ACE index 1 877.97 2 302.26 2 056.51 2 271.29 173.19 0.452
Shannon指数Shannon index 8.77b 9.02ab 9.34a 9.20a 0.103 0.022
Simpson指数Simpson index 0.99 0.99 1.00 1.00 0.003 0.520
PD-whole-tree指数PD-whole-tree index 21.31 25.34 24.48 21.41 1.594 0.432
覆盖度Coverage 0.998 0.998 0.997 0.999 <0.001 0.572
图1 CCA和CA对奶牛瘤胃菌群β多样性的影响

Fig.1 Effects of CCA and CA on β diversity of rumen microbiota in dairy cows

2.4.2 瘤胃菌群组成分析

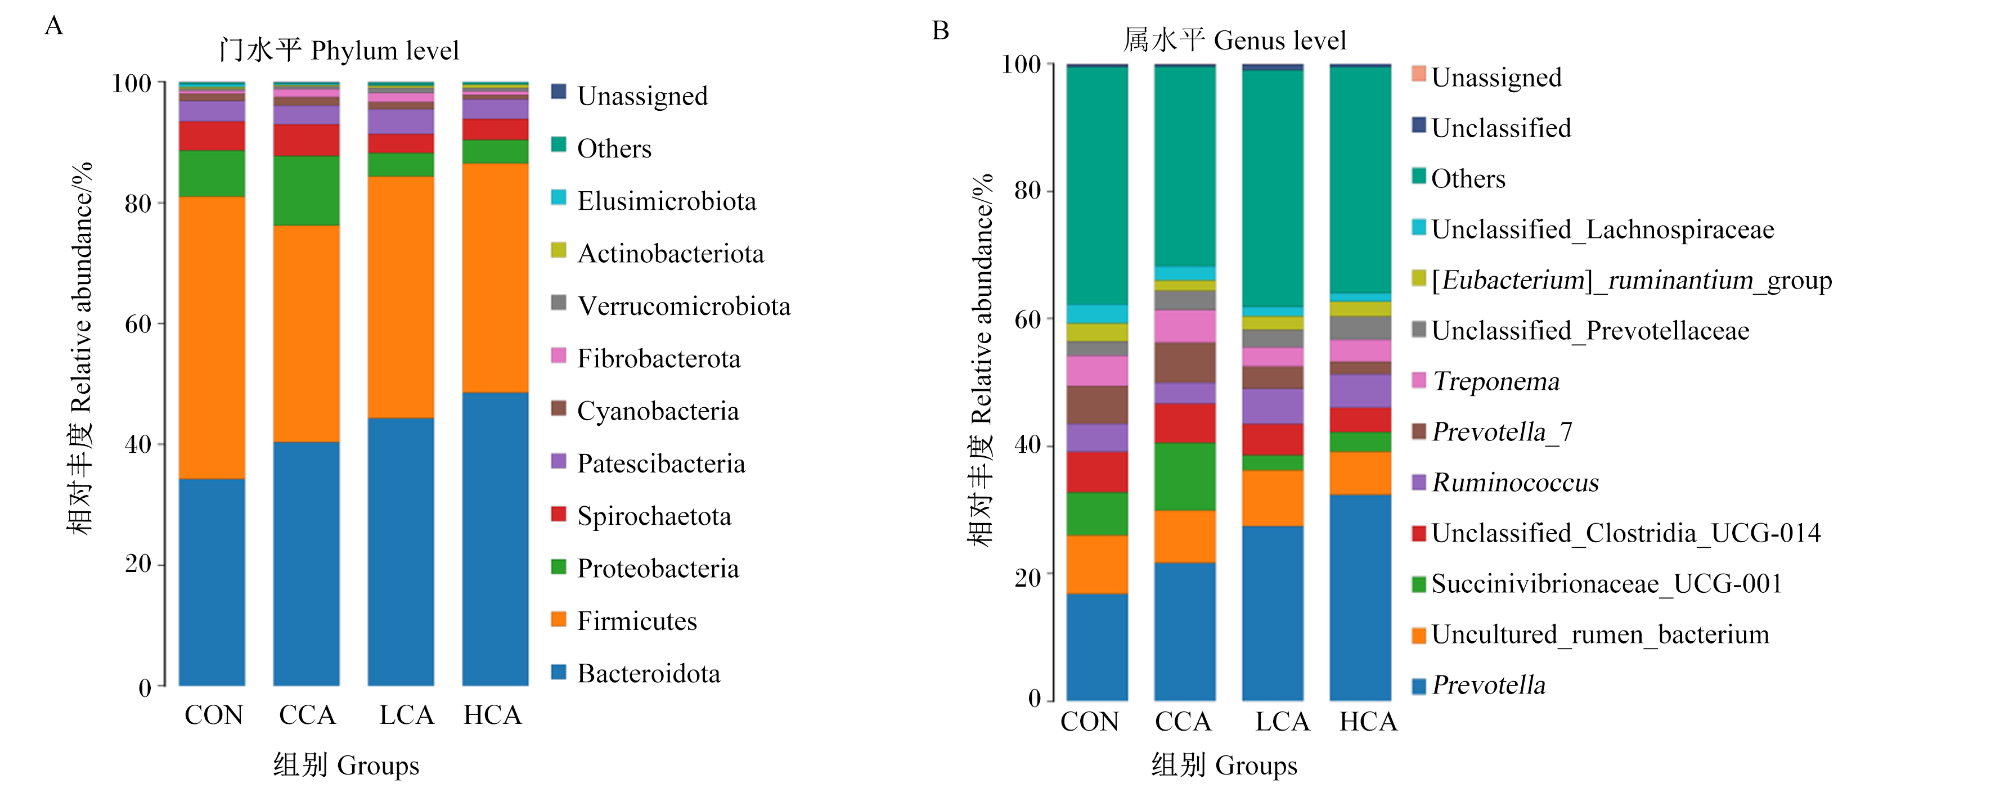
图2所示,在门水平上,奶牛瘤胃菌群中以拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)、变形菌门(Proteobacteria)和螺旋体门(Spirochaetota)为优势菌门;其中,CON组、CCA组、LCA组和HCA组拟杆菌门、厚壁菌门、变形菌门和螺旋体门相对丰度总和分别为93.51%、93.02%、91.40%和93.93%。在属水平上,奶牛瘤胃菌群中以普雷沃氏菌属、未培养瘤胃细菌(uncultured_rumen_bacterium)和琥珀酸弧菌科UCG-001(Succinivibrionaceae_UCG-001)为优势菌属;其中,CON组、CCA组、LCA组和HCA组普雷沃氏菌属、未培养瘤胃细菌和琥珀酸弧菌科UCG-001相对丰度总和分别为39.13%、46.65%、43.51%和46.04%。
图2 CCA和CA对奶牛瘤胃菌群组成的影响

Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Spirochaetota:螺旋体门;Patescibacteria:髌骨菌门;Cyanobacteria:蓝细菌门;Fibrobacterota:纤维杆菌门;Verrucomicrobiota:疣微菌门;Actinobacteriota:放线菌门;Elusimicrobiota:迷踪菌门;Others:其他;Unassigned:未指定;Prevotella:普雷沃氏菌属;Uncultured_rumen_bacterium:未培养瘤胃细菌;Succinivibrionaceae_UCG-001:琥珀酸弧菌科UCG-001;Unclassified_Clostridia_UCG-014:未分类梭菌纲UCG-014;Ruminococcus:瘤胃球菌属;Prevotella_7:普雷沃氏菌属7;Treponema:密螺旋体属;Unclassified_Prevotellaceae:未分类普雷沃氏菌科;[Eubacterium]_ruminantium_group:真杆菌属反刍动物群;Unclassified_Lachnospiraceae:未分类毛螺菌科;Unclassified:未分类。

Fig.2 Effects of CCA and CA on rumen microbiota composition in dairy cows

表6可知,在门水平上,与CON组相比,补充CCA和CA显著提高奶牛瘤胃拟杆菌门和纤维杆菌门(Fibrobacterota)相对丰度(P<0.05),显著降低瘤胃厚壁菌门相对丰度以及厚壁菌门/拟杆菌门值(P<0.05)。同时,LCA组和HCA组瘤胃变形菌门相对丰度显著低于CON组(P<0.05),HCA组蓝细菌门(Cyanobacteria)相对丰度显著低于CON组、CCA组和LCA组(P<0.05)。
表6 CCA和CA对奶牛瘤胃菌群在门水平相对丰度的影响

Table 6 Effects of CCA and CA on relative abundance of rumen microbiota at phylum level in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CCA LCA HCA
拟杆菌门Bacteroidota/% 34.24b 42.39a 44.33a 47.73a 3.491 0.001
厚壁菌门Firmicutes/% 46.79a 36.89b 39.08b 38.02b 3.142 0.017
变形菌门Proteobacteria/% 7.68a 9.51ab 4.88b 3.87b 1.975 0.007
蓝细菌门Cyanobacteria/% 1.18a 1.43a 1.17a 0.71b 0.284 0.025
纤维杆菌门Fibrobacterota/% 0.47b 1.32a 1.51a 1.38a 0.372 0.021
厚壁菌门/拟杆菌门Firmicutes/Bacteroidota 1.37a 0.87b 0.88b 0.80b 0.089 0.007
表7可知,在属水平上,HCA组奶牛瘤胃普雷沃氏菌属相对丰度在4组中最高,其次是LCA组,再次为CCA组,CON组最低,且各组间差异显著(P<0.05);LCA组和HCA组瘤胃琥珀酸弧菌科UCG-001相对丰度显著低于CCA组(P<0.05),与CON组相比无显著差异(P>0.05);HCA组瘤胃未分类梭菌纲UCG-014(unclassified_Clostridia_UCG-014)和普雷沃氏菌属7(Prevotella_7)相对丰度显著低于CON组和CCA组(P<0.05),同时未分类普雷沃氏菌科(unclassified_Prevotellaceae)相对丰度显著高于CON组(P<0.05)。
表7 CCA和CA对奶牛瘤胃菌群在属水平上相对丰度的影响

Table 7 Effects of CCA and CA on relative abundance of rumen microbiota at genus level in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CCA LCA HCA
普雷沃氏菌属Prevotella 16.83d 21.67c 27.43b 32.36a 3.653 0.025
琥珀酸弧菌科UCG-001
Succinivibrionaceae_UCG-001
6.71ab 10.65a 2.34b 3.01b 3.104 0.001
未分类梭菌纲UCG-014
Unclassified_Clostridia_UCG-014
6.34a 6.08a 4.91ab 3.83b 1.011 0.017
普雷沃氏菌属7 Prevotella_7 5.92a 6.20a 3.46ab 1.94b 1.435 0.008
未分类普雷沃氏菌科Unclassified_Prevotellaceae 2.22b 2.93ab 2.71ab 3.57a 0.891 0.020

2.5 CCA和CA对奶牛血清指标的影响

表8可知,补充CCA和CA对奶牛血清葡萄糖、INS、总蛋白、尿素氮、NEFA和BHB含量无显著影响(P>0.05)。CCA组血清白蛋白含量、SOD和GSH-Px活性以及CA含量显著高于CON组、LCA组和HCA组(P<0.05),血清MDA含量显著低于CON组和HCA组(P<0.05)。
表8 CCA和CA对奶牛血清指标的影响

Table 8 Effects of CCA and CA on serum indices in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CCA LCA HCA
葡萄糖Glucose/(mmol/L) 3.64 3.71 3.60 3.67 0.296 0.351
胰岛素INS/(mIU/L) 13.45 13.65 13.65 14.04 1.242 0.577
总蛋白Total protein/(g/L) 66.72 70.68 67.89 69.35 2.859 0.142
白蛋白Albumin/(g/L) 38.08b 41.80a 38.28b 37.40b 1.014 0.047
尿素氮Urea-N/(mmol/L) 6.15 6.23 6.11 6.18 0.462 0.309
游离脂肪酸NEFA/(μmol/L) 368.21 353.12 377.00 359.41 14.080 0.357
β-羟丁酸BHB/(μmol/L) 683.94 664.72 677.91 680.74 16.320 0.234
超氧化物歧化酶SOD/(U/mL) 64.66b 82.74a 69.55b 66.42b 4.332 0.026
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 445.80b 495.74a 455.09b 448.35b 15.030 0.015
丙二醛MDA/(nmol/L) 6.07a 5.10b 5.80ab 6.10a 0.352 0.030
钴胺素CA/(pmol/L) 248.17b 274.00a 242.79b 253.64b 13.740 0.022

3 讨论

3.1 CCA和CA对奶牛泌乳性能的影响

本试验中,补充CCA和CA对奶牛DMI无显著影响,这可能与NDF表观消化率和瘤胃丙酸比例的同步提高有关。丙酸比例提高会使瘤胃液渗透压提高,从而使进入血液和肝脏的丙酸增多,抑制奶牛食欲[17]。然而,提高纤维物质消化率能缓解饲粮对瘤胃的压力,促进奶牛食欲[18]。类似的研究也发现,饲粮添加CCA或CA对泌乳中期或围产期奶牛DMI无显著影响[11,19]
与CON组相比,CCA组奶牛4% FCM产量、乳成分(乳脂、乳蛋白和乳糖)产量以及FE显著提高,这与瘤胃TVFA含量以及血清白蛋白含量、SOD活性、GSH-Px活性和CA含量显著提高有关。该结果表明,CCA通过对乳合成前体物供应、蛋白质合成代谢和能量代谢的综合调控,从而改善奶牛泌乳性能和FE。瘤胃丙酸在肝脏中经糖异生转化为葡萄糖,是乳糖合成的前体物质以及乳合成的主要能量来源;乙酸是小于16碳乳脂肪酸合成的前体[4]。提高乙酸和丙酸的供应能改善奶牛泌乳性能[20-21]。同时,瘤胃VFA含量提高或机体免疫和抗氧化状态改善均能使养分发生重新分配,使更多的营养物质被分配到乳腺组织参与乳合成代谢[22-23]。此外,血清CA含量能反映奶牛各组织的CA状态[4]。CA是机体组织和细胞蛋白质合成及能量代谢的必需因子,CA通过一碳循环参与细胞DNA、谷胱甘肽、蛋白质和肌酸的合成,同时以辅酶的形式参与琥珀酰辅酶A的生成[1-2]。其他研究也发现,补充CCA能够显著提高奶牛4% FCM产量、乳成分产量以及FE[11]。每周肌肉注射10 mg CA显著提高奶牛乳脂、乳蛋白以及能量校正乳产量[5-6]
本试验中,补充CA对4% FCM产量和乳成分产量无显著影响,这与血清CA含量的变化结果一致,表明到达组织参与能量和蛋白质代谢调控的CA有限。据报道,CA能被瘤胃微生物降解为无机钴[10],约80%的CA在瘤胃中被微生物降解或利用[3]。饲粮补充14.7 mg/d CA对奶牛泌乳性能无显著影响[19]

3.2 CCA和CA对奶牛养分表观消化率的影响

本试验中,补充CCA显著提高奶牛DM和OM表观消化率,这与瘤胃TVFA含量的变化结果一致。瘤胃TVFA含量与碳水化合物降解量呈正相关[24]。另外,本试验所用CCA肠道CA释放率为70.52%,能发挥促进养分在肠道消化的营养功能。已有研究报道,山羊肌肉注射补充CA后,DM和OM表观消化率显著提高[25]。体外消化液中补充CA显著提高了瘤胃、小肠以及全消化道DM表观消化率[26]。与CON组相比,CCA组、LCA组和HCA组奶牛NDF表观消化率均显著提高,这与瘤胃乙酸含量提高的结果一致。瘤胃乙酸含量由瘤胃TVFA含量乘以乙酸比例计算所得,CON组、CCA组、LCA组和HCA组瘤胃乙酸含量分别为83.81、88.36、90.36和92.04 mmol/L。研究发现,奶牛瘤胃NDF消化率占全消化道NDF消化率的90%以上[4]。泌乳中期奶牛试验也发现,补充CCA显著提高全消化道NDF表观消化率[11-12]
补充CA对奶牛DM和OM表观消化率无显著影响,这与到达肠道的CA含量有限有关,表现为血清CA含量无显著变化。据报道,饲粮补充的CA只有约20%能到达十二指肠[3];补充14.7 mg/d CA对奶牛各养分表观消化率无显著影响[19]

3.3 CCA和CA对奶牛瘤胃发酵参数和菌群的影响

本试验中,与CON组相比,LCA组和HCA组奶牛瘤胃pH显著降低,分别为6.24和6.19,对菌群生长和碳水化合物降解无负面影响,可归因于TVFA含量的提高[27]
与CON组相比,CCA组、LCA组和HCA组瘤胃TVFA含量和丙酸比例显著提高,瘤胃乙酸/丙酸值显著降低,表明碳水化合物降解菌(尤其是丙酸产生菌)相对丰度提高。CA是细菌、真菌和原虫生长的必需因子,参与DNA、乙酰辅酶A和丙酰辅酶A的合成[7]。CA以辅酶的形式参与甲基丙二酰辅酶A的合成,这一反应是瘤胃丙酸生成的关键步骤[7]。前期试验发现,补充CCA显著提高了奶牛瘤胃中细菌、真菌和原虫数量,羧甲基纤维素酶和纤维二糖酶活性,以及TVFA和丙酸含量[11-12]。体外试验发现,补充CA显著提高了奶牛瘤胃TVFA和丙酸含量[9,26]
补充CCA和CA趋向于提高或显著提高奶牛瘤胃菌群Shannon指数,表明瘤胃菌群多样性增加。各组奶牛瘤胃菌群中优势菌门为拟杆菌门、厚壁菌门、变形菌门和螺旋体门,相对丰度总和为91.40%~93.93%,与文献报道结果[28]一致。
补充CCA或CA显著提高奶牛瘤胃拟杆菌门和纤维杆菌门相对丰度,显著降低瘤胃厚壁菌门/拟杆菌门值,这一结果解释了TVFA含量和丙酸比例的提高。在瘤胃中,厚壁菌门细菌分泌的碳水化合物降解酶约占23.4%,降解底物是纤维类物质,产物主要为乙酸;拟杆菌门细菌分泌的碳水化合物降解酶约占43.8%,降解底物是非纤维类物质(淀粉、蛋白质),产物主要为丙酸[29-30]。据报道,奶牛瘤胃中厚壁菌门/拟杆菌门值降低更有利于碳水化合物降解和瘤胃健康[31]
补充CCA和CA显著提高奶牛瘤胃普雷沃氏菌属相对丰度,这一结果解释了瘤胃丙酸比例的提高和乙酸/丙酸值的降低。普雷沃氏菌属细菌的代谢产物为丙酸,属于拟杆菌门[29-30]。体外试验也发现,CA是牛瘤胃普雷沃氏菌属的必需营养因子[8]。补充CA能够刺激奶牛体外瘤胃液中普雷沃氏菌科UCG-003(Prevotellaceae_UCG-003)和未分类普雷沃氏菌科细菌的生长[9]。奶牛瘤胃普雷沃氏菌属相对丰度与CA含量呈正相关[32]
比较CA不同添加方式(CCA和CA)对瘤胃VFA含量和菌群的影响发现,CCA组、LCA组和HCA组间瘤胃TVFA含量、各VFA比例以及在门水平上排名前10的菌群(蓝细菌门除外)相对丰度无显著差异。在属水平上,与CCA组相比,LCA组和HCA组瘤胃普雷沃氏菌属相对丰度显著提高,瘤胃琥珀酸弧菌科UCG-001相对丰度显著降低。该结果显示,提高瘤胃中CA补充量更有助于促进普雷沃氏菌的生长,而且可能改善瘤胃免疫和抗氧化状态。琥珀酸弧菌科UCG-001属于变形菌门,也是瘤胃中重要的丙酸产生菌[29-30]。据报道,瘤胃琥珀酸弧菌科相对丰度较高的奶牛,瘤胃CA含量也较高;琥珀酸弧菌科UCG-001相对丰度与奶牛血清免疫球蛋白A含量呈负相关,与牛奶体细胞数量呈正相关[32-33]

3.4 CCA和CA对奶牛血清指标的影响

本试验中,补充CCA对奶牛血清葡萄糖、INS、NEFA和BHB含量无显著影响,表明奶牛泌乳性能改善与养分利用率提高有关。其他研究也发现,奶牛血浆CA含量与NEFA和BHB含量无显著相关性[34]。肌肉注射补充CA对泌乳早期奶牛血浆葡萄糖、尿素氮、NEFA和BHB含量无显著影响[5-6]。补充CCA显著提高血清白蛋白含量、SOD和GSH-Px活性以及CA含量,表明CCA能改善奶牛的免疫和抗氧化状态。据报道,CA通过一碳循环参与谷胱甘肽和牛磺酸的合成,对提高奶牛抗氧化能力有重要作用[1]。补充CA对奶牛血清各指标无显著影响,表明补充6和12 mg/d CA不能改善奶牛CA状态。其他研究也发现,饲粮添加CA对奶牛血液CA含量无显著影响,肌肉注射补充CA显著提高奶牛血液CA含量[19]

4 结论

泌乳早期奶牛补充CCA和CA能够提高CP和NDF表观消化率,瘤胃TVFA含量和丙酸比例,以及瘤胃拟杆菌门、纤维杆菌门和普雷沃氏菌属相对丰度;补充CCA还能够提高4% FCM产量、乳成分产量和FE,DM和OM表观消化率,以及血清SOD、GSH-Px活性和CA含量。
[1]
COLEMAN D N, ALHARTHI A S, LIANG Y S, et al. Multifaceted role of one-carbon metabolism on immunometabolic control and growth during pregnancy,lactation,and the neonatal period in dairy cattle[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):27.

DOI

[2]
MILLER J W, SMITH A, TROEN A M, et al. Excess folic acid and vitamin B12 deficiency:clinical implications?[J]. Food and Nutrition Bulletin, 2024,45 (Suppl.1):S67-S72.

[3]
GIRARD C L, SANTSCHI D E, STABLER S P, et al. Apparent ruminal synthesis and intestinal disappearance of vitamin B12 and its analogs in dairy cows[J]. Journal of Dairy Science, 2009, 92(9):4524-4529.

DOI

[4]
National Academies of Sciences,Engineering,and Medicine. Nutrient requirements of dairy cattle[M].8th rev. ed.Washington,D. C.:The National Academies Press, 2021.

[5]
GIRARD C L, MATTE J J. Effects of intramuscular injections of vitamin B12 on lactation performance of dairy cows fed dietary supplements of folic acid and rumen-protected methionine[J]. Journal of Dairy Science, 2005, 88(2):671-676.

DOI

[6]
WANG D M, ZHANG B X, WANG J K, et al. Effect of dietary supplements of biotin,intramuscular injections of vitamin B12,or both on postpartum lactation performance in multiparous dairy cows[J]. Journal of Dairy Science, 2018, 101(9):7851-7856.

DOI

[7]
MARTENS J H, BARG H, WARREN M J, et al. Microbial production of vitamin B12[J]. Applied Microbiology and Biotechnology, 2002, 58(3):275-285.

PMID

[8]
SHIN H T, LEE S W, PARK K M, et al. Nutritional requirements of Prevotella sp. isolated from the rumen of the goat[J]. Biotechnology and Bioprocess Engineering, 2004, 9(4):313-317.

DOI

[9]
LIU Z H, WANG K, NAN X M, et al. Effects of combined addition of 3-nitrooxypropanol and vitamin B12 on methane and propionate production in dairy cows by in vitro-simulated fermentation[J]. Journal of Dairy Science, 2023, 106(1):219-232.

DOI

[10]
BONHOMME A. Rumen ciliates:their metabolism and relationships with bacteria and their hosts[J]. Animal Feed Science and Technology, 1990, 30(3/4):203-266.

DOI

[11]
黄实, 闫国骏, 崔航, 等. 饲粮添加钴胺素对荷斯坦奶牛泌乳性能、瘤胃发酵和肝脏糖异生的影响[J]. 动物营养学报, 2024, 36(2):1020-1028.

DOI

HUANG S, YAN G J, CUI H, et al. Effects of dietary cobalamin on lactation performance,rumen fermentation and liver gluconogenesis of Holstein dairy cows[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):1020-1028. (in Chinese)

DOI

[12]
WANG C, AN J, BU L J, et al. Effects of biotin and coated cobalamin on lactation performance,nutrient digestion and rumen fermentation in Holstein dairy cows[J]. Journal of Animal Physiology and Animal Nutrition, 2024, 108(3):635-645.

DOI

[13]
WANG K, LIU Z H, DU C M, et al. Responses of fermentation characteristics and microbial communities to vitamin B12 supplementation in in vitro ruminal cultures[J]. Fermentation, 2022, 8(8):406.

DOI

[14]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中钴的测定原子吸收光谱法:GB/T 13884—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation,National Standardization Administration. Determination of cobalt in feeds—atomic absorption spectrometry:GB/T 13884—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[15]
HORWITZ W. Official method of analysis[S]. 18th ed. Gaithersburgs: AOAC International, 2006.

[16]
VAN KEULEN J, YOUNG B A. Evaluation of acid-insoluble ash as a natural marker in ruminant digestibility studies[J]. Journal of Animal Science, 1977, 44(2):282-287.

DOI

[17]
ALLEN M S, BRADFORD B J, OBA M. Board invited review:the hepatic oxidation theory of the control of feed intake and its application to ruminants[J]. Journal of Animal Science, 2009, 87(10):3317-3334.

DOI

[18]
OBA M, KAMMES-MAIN K. Symposium review:effects of carbohydrate digestion on feed intake and fuel supply[J]. Journal of Dairy Science, 2023, 106(3):2153-2160.

DOI

[19]
WEERATHILAKE W A D V, BRASSINGTON A H, WILLIAMS S J, et al. Added dietary cobalt or vitamin B12,or injecting vitamin B12 does not improve performance or indicators of ketosis in pre- and post-partum Holstein-Friesian dairy cows[J]. Animal, 2019, 13(4):750-759.

DOI

[20]
MATAMOROS C, HAO F, TIAN Y, et al. Interaction of sodium acetate supplementation and dietary fiber level on feeding behavior,digestibility,milk synthesis,and plasma metabolites[J]. Journal of Dairy Science, 2022, 105(11):8824-8838.

DOI

[21]
REYES G C, INNES D J, ELLIS J L, et al. Relationship between rate of glucose or propionate infusion and milk protein yield and concentration in dairy cows:a Meta-regression[J]. Journal of Dairy Science, 2024, 107(5):2785-2796.

DOI

[22]
BAUMGARD L H, COLLIER R J, BAUMAN D E. A 100-year review:regulation of nutrient partitioning to support lactation[J]. Journal of Dairy Science, 2017, 100(12):10353-10366.

DOI

[23]
PIANTONI P, VANDEHAAR M J. Symposium review:the impact of absorbed nutrients on energy partitioning throughout lactation[J]. Journal of Dairy Science, 2023, 106(3):2167-2180.

DOI

[24]
NOZIÈRE P, GLASSER F, SAUVANT D. In vivo production and molar percentages of volatile fatty acids in the rumen:a quantitative review by an empirical approach[J]. Animal, 2011, 5(3):403-414.

DOI

[25]
KADIM I T, JOHNSON E H, MAHGOUB O, et al. Effect of low levels of dietary cobalt on apparent nutrient digestibility in Omani goats[J]. Animal Feed Science and Technology, 2003, 109(1/2/3/4):209-216.

DOI

[26]
PARNIAN-KHAJEHDIZAJ F, TAGHIZADEH A, HOSSEINKHANI A, et al. Evaluation of dietary supplementation of B vitamins and HMBi on fermentation kinetics,ruminal or post-ruminal diet digestibility using modified in vitro techniques[J]. Journal of BioScience and Biotechnology, 2018, 7(2/3):125-133.

[27]
DIJKSTRA J, ELLIS J L, KEBREAB E, et al. Ruminal pH regulation and nutritional consequences of low pH[J]. Animal Feed Science and Technology, 2012, 172(1/2):22-33.

DOI

[28]
SUN H Z, XUE M Y, GUAN L L, et al. A collection of rumen bacteriome data from 334 mid-lactation dairy cows[J]. Scientific Data, 2019, 6(1):180301.

DOI

[29]
COMTET-MARRE S, PARISOT N, LEPERCQ P, et al. Metatranscriptomics reveals the active bacterial and eukaryotic fibrolytic communities in the rumen of dairy cow fed a mixed diet[J]. Frontiers in Microbiology, 2017, 8:67.

[30]
NAAS A E, MACKENZIE A K, MRAVEC J, et al. Do rumen Bacteroidetes utilize an alternative mechanism for cellulose degradation?[J]. mBio, 2014, 5(4):e01401-14.

[31]
董春晓, 戴东文, 徐晓锋, 等. 亚急性瘤胃酸中毒对奶牛胃肠道健康影响的研究进展[J]. 动物营养学报, 2023, 35(8):4767-4776.

DOI

DONG C X, DAI D W, XU X F, et al. Research progress on effects of subacute ruminal acidosis on gastrointestinal health of dairy cows[J]. Chinese Journal of Animal Nutrition, 2023, 35(8):4767-4776. (in Chinese)

DOI

[32]
FRANCO-LOPEZ J, DUPLESSIS M, BUI A, et al. Correlations between the composition of the bovine microbiota and vitamin B12 abundance[J]. mSystems, 2020, 5(2):e00107-20.

[33]
张腾龙, 郭晨阳, 宋洁, 等. 中草药提取物复合制剂对乳中高体细胞数奶牛生产性能、免疫和抗氧化功能及瘤胃细菌区系的影响[J]. 动物营养学报, 2023, 35(1):287-300.

DOI

ZHANG T L, GUO C Y, SONG J, et al. Effects of compound preparation of Chinese herbal extract on performance,immune and antioxidant function and ruminal bacterial flora of cows with high somatic cell count in milk[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):287-300. (in Chinese)

[34]
DUPLESSIS M, CHORFI Y, GIRARD C L. Longitudinal data to assess relationships among plasma folate,vitamin B12,non-esterified fatty acid,and β-hydroxybutyrate concentrations of Holstein cows during the transition period[J]. Metabolites, 2023, 13(4):547.

DOI

文章导航

/