研究论文

饲粮添加发酵银柴胡对滩羊生长性能、免疫功能、抗氧化能力和瘤胃发酵的影响

  • 潘利国 ,
  • 刘嘉东 ,
  • 陈晓东 , * ,
  • 张桂杰 , *
展开
  • 宁夏大学动物科技学院, 银川 750021
* 陈晓东,讲师,硕士生导师,E-mail: ;
张桂杰,教授,博士生导师,E-mail:

潘利国(1999—),男,甘肃定西人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 田艳明

收稿日期: 2026-01-28

  网络出版日期: 2026-09-12

基金资助

国家重点研发计划项目(2022YFD1300905)

宁夏回族自治区重点研发计划项目(2021BEG02020)

宁夏回族自治区重点研发计划项目(2021BEG02042)

Effects of Dietary Supplementation with Fermented Stellaria dichotoma var. lanceolata Bunge on Growth Performance, Immune Function, Antioxidant Capacity and Rumen Fermentation of Tan Sheep

  • PAN Liguo ,
  • LIU Jiadong ,
  • CHEN Xiaodong , * ,
  • ZHANG Guijie , *
Expand
  • School of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
* CHEN Xiaodong, lecturer, E-mail: ;
ZHANG Guijie, professor, E-mail:

Received date: 2026-01-28

  Online published: 2026-09-12

摘要

本试验旨在探究饲粮添加发酵银柴胡对滩羊生长性能、免疫功能、抗氧化能力和瘤胃发酵的影响。选取30只4月龄健康滩羊公羔[初始体重为(20.13±0.36) kg],随机分为对照组(CON组,饲喂基础饲粮)和试验组[FS组,饲喂基础饲粮+120 g/(只·d)发酵银柴胡(鲜重)],每组15只羊,单栏饲养。预试期14 d,正试期90 d。结果表明:1)2组间终末体重、平均日采食量、平均日增重和料重比均无显著差异(P>0.05)。2)与CON组相比,FS组血清免疫球蛋白A含量极显著提高(P<0.01),血清免疫球蛋白G和免疫球蛋白M含量显著提高(P<0.05),血清肿瘤坏死因子-α含量极显著降低(P<0.01)。3)与CON组相比,FS组背最长肌超氧化物歧化酶活性显著提高(P<0.05),背最长肌过氧化氢酶活性有显著提高趋势(P=0.058)。4)与CON组相比,FS组瘤胃丙酸含量显著提高(P<0.05),瘤胃pH有显著提高趋势(P=0.063),瘤胃乙丙比有显著降低趋势(P=0.061)。5)与CON组相比,FS组瘤胃微生物群落Simpson指数极显著降低(P<0.01);主坐标分析(PCoA)结果显示,2组间瘤胃微生物群落β多样性存在显著差异(P<0.05)。在属水平上,与CON组相比,FS组瘤胃UCG-010、拟杆菌目RF16群(Bacteroidales_RF16_group)和拟普雷沃氏菌属(Alloprevotella)等相对丰度极显著提高(P<0.01),瘤胃韦荣氏菌科UCG-001(Veillonellaceae_UCG-001)、丹毒丝菌科UCG-009(Erysipelotrichaceae_UCG-009)和聚乙酸菌属(Acetitomaculum)等相对丰度极显著降低(P<0.01)。综上所述,饲粮添加发酵银柴胡虽未显著改善滩羊生长性能,但可增强机体免疫功能,提高肌肉抗氧化能力,并优化瘤胃发酵模式和微生物群落。

本文引用格式

潘利国 , 刘嘉东 , 陈晓东 , 张桂杰 . 饲粮添加发酵银柴胡对滩羊生长性能、免疫功能、抗氧化能力和瘤胃发酵的影响[J]. 动物营养学报, 2026 , 38(9) : 6772 -6786 . DOI: 10.12418/CJAN2026.542

Abstract

This experiment was conducted to investigate the effects of dietary supplementation with fermented Stellaria dichotoma var. lanceolata Bunge (FS) on growth performance, immune function, antioxidant capacity and rumen fermentation of Tan sheep. Thirty healthy 4-month-old male Tan lambs with initial body weight of (20.13±0.36) kg were randomly allocated into a control group (CON group, fed a basal diet) and an experimental group [FS group, fed the basal diet supplemented with 120 g/(head·d) FS, fresh weight], with 15 lambs per group and housed individually. The pre-trial period lasted 14 days, followed by a 90-day formal trial. The results showed as follows: 1) no significant differences were observed between the two groups in final body weight, average daily feed intake, average daily gain and feed-to-gain ratio (P>0.05). 2) Compared with CON group, FS group showed an extremely significant increase in serum immunoglobulin A content (P<0.01), significant increases in serum immunoglobulin G and immunoglobulin M contents (P<0.05), and an extremely significant decrease in serum tumor necrosis factor-α content (P<0.01). 3) Compared with CON group, FS group had a significant increase in superoxide dismutase activity in longissimus dorsi (P<0.05), and a trend towards increased catalase activity in longissimus dorsi (P=0.058). 4) Compared with CON group, FS group showed a significant increase in rumen propionic acid content (P<0.05), a trend towards increased rumen pH (P=0.063), and a trend towards decreased rumen acetic acid-to-propionic acid ratio (P=0.061). 5) Compared with CON group, FS group exhibited an extremely significant decrease in Simpson index of rumen microbiota (P<0.01); the principal coordinate analysis (PCoA) revealed a significant difference in β diversity of rumen microbiota between the two groups (P<0.05). At the genus level, compared with CON group, FS group had extremely significantly higher relative abundances of genera such as UCG-010, Bacteroidales_RF16_group and Alloprevotella in rumen (P<0.01), while had extremely significantly lower relative abundances of genera such as Veillonellaceae_UCG-001, Erysipelotrichaceae_UCG-009 and Acetitomaculum (P<0.01). In conclusion, although dietary supplementation with FS does not significantly improve growth performance of Tan sheep, it can enhance immune function, increase muscle antioxidant capacity, and optimize rumen fermentation patterns and microbiota.

为实现畜牧业的可持续发展,我国西北地区实施了全面禁牧和休牧政策,滩羊的主要生产方式已由放牧转为舍饲[1]。研究表明,运动量减少和饲粮成分单一间接导致滩羊免疫功能和生产性能下降[2]。鉴于抗生素耐药性对食品安全和公共健康的潜在风险,我国自2020年起全面禁止在饲料端使用促生长类抗生素。在此背景下,寻找安全有效的抗生素替代方案对实现动物健康养殖、食品安全保障和公共卫生维护的协同发展具有重要意义[3]。中草药因其天然性、低残留性和不易诱导耐药性等优势,被视为理想的抗生素替代品之一[4]。银柴胡(Stellaria dichotoma var. lanceolata Bunge)作为我国西北地区特色的药用植物,富含甾醇、皂苷、生物碱和黄酮类等生物活性化合物,具有抗菌、消炎和抗氧化等多种生物学功能。例如,从银柴胡中已分离鉴定出菠菜甾醇、豆甾醇等甾醇类成分,槲皮素、山奈酚等黄酮类物质,以及β-咔啉类生物碱和环肽类化合物;现代药理学研究证实,其乙醇提取物在体外和体内模型中均能有效抑制脓肿分枝杆菌(Mycobacterium abscessus)等病原体引起的过度炎症反应,通过调控核因子-κB(NF-κB)、丝裂原活化蛋白激酶(MAPK)信号通路及抑制细胞内活性氧(ROS)生成发挥抗炎和免疫调节作用[5]。研究表明,银柴胡作为饲料添加剂具有较高的安全性和营养价值,具备良好的开发潜力[6]。然而,其活性成分受致密细胞壁的物理屏障作用难以释放,药效发挥缓慢,药用成分难以被机体利用,导致生物利用度低,严重限制了其实际的应用效果。菌酶协同发酵技术可有效破坏植物细胞壁结构,提升活性物质释放率和利用率,同时降低抗营养因子含量,改善饲料适口性和营养物质消化率,这为规模化生产提供了可行的解决方案[7]。已有研究表明,饲粮添加1.0%菌酶协同发酵的复方中草药可显著提高断奶仔猪平均日增重(ADG),降低料重比(F/G),同时增强免疫功能和抗氧化能力[8]。在反刍动物中,发酵中药渣的添加也显示出改善生产性能和蛋白质代谢的潜力[9]。作为我国西北地区特色的经济畜种,滩羊的健康状况和生产效能对区域畜牧产业发展具有重要影响。目前,关于菌酶协同发酵银柴胡在滩羊生产中的应用研究尚未见报道。因此,本研究旨在探究饲粮添加发酵银柴胡对滩羊生长性能、免疫功能、抗氧化能力和瘤胃发酵的影响,以期为银柴胡的高值化利用提供科学依据,并推动畜牧业可持续发展。

1 材料与方法

1.1 试验材料

本试验所用发酵银柴胡为市购产品。发酵所用复合益生菌由酵母菌(活菌数≥1×10¹⁰ CFU/g)、乳酸菌(活菌数≥1×1010 CFU/g)和枯草芽孢杆菌(活菌数≥1×1011 CFU/g)组成,按每克发酵底物1×107 CFU/g的接种量添加;酶制剂包括纤维素酶、淀粉酶和蛋白酶(活性均≥1×104 U/g),其添加量分别占发酵底物质量的0.04%、0.02%和0.02%。在30 ℃下发酵72 h后,发酵银柴胡的粗蛋白质(CP)、粗脂肪(EE)、粗纤维、粗灰分、钙和磷含量分别为10.45%、3.03%、16.73%、14.15%、3.51%和0.93%[干物质(DM)基础];其主要活性成分总甾醇、总黄酮和多糖含量分别为0.49%、0.41%和10.61%(DM基础)。

1.2 试验设计和饲养管理

本动物试验经宁夏大学动物伦理委员会批准(批准号:NXUC 20200618),在宁夏吴忠红寺堡区天源良种羊繁育养殖有限公司进行。选取30只4月龄健康滩羊公羔[初始体重为(20.13±0.36) kg],随机分为对照组(CON组,饲喂基础饲粮)和试验组[FS组,饲喂基础饲粮+120 g/(只·d)发酵银柴胡(鲜重)],每组15只羊,单栏饲养(栏位尺寸2.0 m×1.5 m)。基础饲粮参照《肉羊营养需要量》(NY/T 816—2021)配制,其组成及营养水平见表1。预试期14 d,正试期90 d。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)

项目Items 含量Content
原料Ingredients
玉米Corn 43.20
苜蓿干草Alfalfa hay 17.00
稻草Rice straw 13.35
豆粕Soybean meal 12.50
胡麻饼粕Flaxseed meal 4.75
玉米秸秆Corn stalk 3.70
食盐NaCl 1.50
碳酸氢钠NaHCO3 0.30
磷酸氢二钠Na2HPO4 0.20
预混料Premix1) 3.50
合计Total 100.00
营养水平Nutrient levels2)
干物质(风干基础) DM (air-dry basis) 90.73
代谢能ME/(MJ/kg) 8.83
粗蛋白质CP 14.68
粗脂肪EE 4.98
中性洗涤纤维NDF 44.70
酸性洗涤纤维ADF 23.03
钙Ca 0.54
磷P 0.28

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:VA 20 000 IU,VD3 4 000 IU,VE 40 IU,Cu 15 mg,Fe 55 mg,Zn 25 mg,Mn 40 mg,Se 0.3 mg,I 0.5 mg,Co 0.2 mg。

2)代谢能为计算值,根据《肉羊营养需要量》(NY/T 816—2021)计算;其他营养水平为实测值。ME was a calculated value in accordance with Nutrient Requirements of Meat-Type Sheep and Goat (NY/T 816—2021), while the other nutrient levels were measured values.

试验前对羊舍进行消毒,所有试验羊接种口蹄疫和羊痘疫苗,并进行驱虫和布鲁氏菌病检测。试验期间,羔羊自由采食和饮水,每日饲喂2次(08:00和16:00各1次)。FS组晨饲时先将发酵银柴胡混于少量全混合日粮中投喂,采食完毕后再补足饲粮。

1.3 样品采集

正试期第90天,每组从15只试验羊中随机选取4只(n=4),用于血清免疫指标、肌肉抗氧化指标以及瘤胃发酵参数和微生物区系的测定。试验羊选取后先于晨饲前采集颈静脉血样;血样采集完成后进行屠宰,屠宰前禁食24 h、禁水2 h;屠宰后采集背最长肌组织和瘤胃液样品,分别用于后续相关指标检测。

1.4 指标测定

1.4.1 饲粮营养成分含量

正试期间,每周采集1次饲粮样品,65 ℃烘干12 h,室温冷却至恒重后粉碎混匀,密封保存待测。饲粮中DM含量采用105 ℃烘箱恒重法(GB/T 6435—2014)测定;CP含量采用凯氏定氮法(GB/T 6432—2018)测定氮含量,并用氮含量×6.25计算CP含量;EE含量采用索氏抽提法(GB/T 6433—2006)测定;中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量参照Van Soest等[10]的方法,分别使用中性洗涤剂和酸性洗涤剂处理样品后测定;钙和磷含量分别采用高锰酸钾滴定法(GB/T 6436—2018)和分光光度法(GB/T 6437—2018)测定。

1.4.2 生长性能

正试期间,每日记录饲粮投料量和剩料量以计算平均日采食量(ADFI);每2周于晨饲前对试验羊进行空腹称重,计算全期ADG,并计算F/G。

1.4.3 血清免疫指标

于正试期第90天,采集试验羊颈静脉血样10 mL,经4 ℃、3 000×g离心10 min后分离血清,于-20 ℃冻存备用。采用酶联免疫吸附试验(ELISA)法测定血清免疫球蛋白G(IgG)、免疫球蛋白A(IgA)、免疫球蛋白M(IgM)、干扰素-γ(IFN-γ)和肿瘤坏死因子-α(TNF-α)含量,所有检测均严格按照江苏宝莱生物科技有限公司提供的试剂盒说明书进行操作。

1.4.4 肌肉抗氧化指标

取上述屠宰试验羊背最长肌组织与磷酸盐缓冲液(PBS)按1∶9(wv)比例于玻璃匀浆器中进行匀浆,经4 ℃、4 000×g离心10 min后,取上清液于-80 ℃保存待测。采用南京建成生物工程研究所生产的试剂盒,按照操作说明书测定背最长肌过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)活性以及总抗氧化能力(T-AOC)。

1.4.5 瘤胃发酵参数

正试期第90天,采集屠宰试验羊瘤胃内容物,经真空泵抽取后通过4层医用纱布过滤获得瘤胃液。样品分装为4份:1份立即采用pH计(STARTER 2100,OHAUS,美国)测定pH;其余3份迅速置于干冰中保存并带回实验室,分别用于氨态氮(NH3-N)含量、挥发性脂肪酸(VFA)组成及微生物区系分析。NH3-N含量参照冯宗慈等[11]的方法测定;VFA组成参照Jin等[12]的方法,采用气相色谱仪(6850,Agilent Technologies,美国)进行分析。

1.4.6 瘤胃微生物区系

采用DNeasy PowerSoil试剂盒(QIAGEN,德国)提取上述瘤胃液样本微生物总DNA,操作按说明书进行,提取的DNA保存于-80 ℃备用。采用分光光度计(NanoDrop ND-1000,Thermo Fisher Scientific,美国)测定DNA浓度,并用1%琼脂糖凝胶电泳检测DNA纯度。采用特异性引物515F(5'-GTGCCAGCMGCCGCGGTAA-3')和907R(5'-CCGTCAATTCMTTTRAGTTT-3')扩增细菌16S rRNA基因V4~V5区,PCR扩增产物经AMPure Beads(Beckman Coulter,美国)纯化后,使用Illumina NovaSeq 6000平台(Illumina,美国)进行双端测序。测序工作委托陕西艾睿生物科技有限公司完成。基于Greengenes数据库对操作分类单元(OTU)进行物种注释,利用QIIME 1.8.0和R语言3.3.1软件分析瘤胃微生物群落多样性和组成,并采用Wilcoxon秩和检验分析α多样性指数和菌属相对丰度的差异。

1.5 数据统计分析

试验数据采用SPSS 19.0软件进行独立样本t检验,结果数据以平均值和均值标准误(SEM)表示;P<0.01表示差异极显著,P<0.05表示差异显著,0.05≤P<0.10表示差异有显著趋势。采用Spearman相关分析评估血清免疫指标、肌肉抗氧化指标、瘤胃发酵参数与瘤胃差异菌属相对丰度的相关性。

2 结果与分析

2.1 饲粮添加发酵银柴胡对滩羊生长性能的影响

表2可知,2组间滩羊终末体重、ADFI、ADG和F/G均无显著差异(P>0.05),表明饲粮添加发酵银柴胡对滩羊生长性能无显著影响。
表2 饲粮添加发酵银柴胡对滩羊生长性能的影响

Table 2 Effects of dietary supplementation with fermented Stellaria dichotoma var. lanceolata Bunge on growth performance of Tan sheep

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON FS
初始体重IBW/kg 20.34 20.38 0.771 0.963
终末体重FBW/kg 34.68 35.01 0.714 0.651
平均日采食量ADFI/(g/d) 1 328.86 1 349.94 143.605 0.887
平均日增重ADG/(g/d) 155.88 159.10 5.513 0.589
料重比F/G 8.51 8.47 0.778 0.972

同行数据肩标无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 饲粮添加发酵银柴胡对滩羊血清免疫指标的影响

表3可知,与CON组相比,FS组滩羊血清IgA含量极显著提高(P<0.01),血清IgG和IgM含量显著提高(P<0.05),分别提高15.28%、11.54%和7.17%;血清TNF-α含量极显著降低(P<0.01),降低17.37%;血清IFN-γ含量有显著提高趋势(P=0.062)。
表3 饲粮添加发酵银柴胡对滩羊血清免疫指标的影响

Table 3 Effects of dietary supplementation with fermented Stellaria dichotoma var. lanceolata Bunge on serum immune indices of Tan sheep

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON FS
免疫球蛋白G IgG/(μg/mL) 9.10b 10.15a 0.851 0.021
免疫球蛋白A IgA/(μg/mL) 42.28B 48.74A 1.982 0.003
免疫球蛋白M IgM/(μg/mL) 312.29b 334.69a 8.721 0.016
干扰素-γ IFN-γ/(pg/mL) 27.43 29.73 2.471 0.062
肿瘤坏死因子-α TNF-α/(pg/mL) 29.93A 24.73B 1.228 <0.001

2.3 饲粮添加发酵银柴胡对滩羊肌肉抗氧化指标的影响

表4可知,与CON组相比,FS组滩羊背最长肌SOD活性显著提高(P<0.05),背最长肌CAT活性有显著提高趋势(P=0.058),背最长肌T-AOC和GSH-Px活性无显著差异(P>0.05)。
表4 饲粮添加发酵银柴胡对滩羊肌肉抗氧化指标的影响

Table 4 Effects of dietary supplementation with fermented Stellaria dichotoma var. lanceolata Bunge on muscle antioxidant indices of Tan sheep

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON FS
总抗氧化能力T-AOC/(μmol Trolox/g) 0.87 0.84 0.081 0.732
过氧化氢酶CAT/(U/g) 307.47 321.41 15.173 0.058
谷胱甘肽过氧化物酶GSH-Px/(U/g) 2 349.82 2 478.96 96.005 0.232
超氧化物歧化酶SOD/(U/g) 122.64b 175.95a 22.410 0.033

2.4 饲粮添加发酵银柴胡对滩羊瘤胃发酵参数的影响

表5可知,与CON组相比,FS组滩羊瘤胃丙酸含量显著提高(P<0.05),瘤胃pH有显著提高趋势(P=0.063),瘤胃乙丙比(A/P)有显著降低趋势(P=0.061),瘤胃乙酸、丁酸、异丁酸、戊酸、异戊酸和NH3-N含量无显著差异(P>0.05)。
表5 饲粮添加发酵银柴胡对滩羊瘤胃发酵参数的影响

Table 5 Effects of dietary supplementation with fermented Stellaria dichotoma var. lanceolata Bunge on rumen fermentation parameters of Tan sheep

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON FS
pH 6.52 6.78 0.761 0.063
乙酸Acetic acid/(mmol/L) 35.27 34.72 0.627 0.434
丙酸Propionic acid/(mmol/L) 13.16b 15.48a 1.421 0.037
乙丙比A/P 2.67 2.24 0.108 0.061
丁酸Butyric acid/(mmol/L) 7.48 7.86 0.653 0.314
异丁酸Iso-butyric acid/(mmol/L) 0.54 0.72 0.451 0.939
戊酸Valeric acid/(mmol/L) 0.68 0.55 0.414 0.406
异戊酸Iso-valeric acid/(mmol/L) 0.74 0.91 0.360 0.443
氨态氮NH3-N/(mg/dL) 10.61 10.65 0.073 0.986

2.5 饲粮添加发酵银柴胡对滩羊瘤胃微生物区系的影响

2.5.1 菌群多样性分析
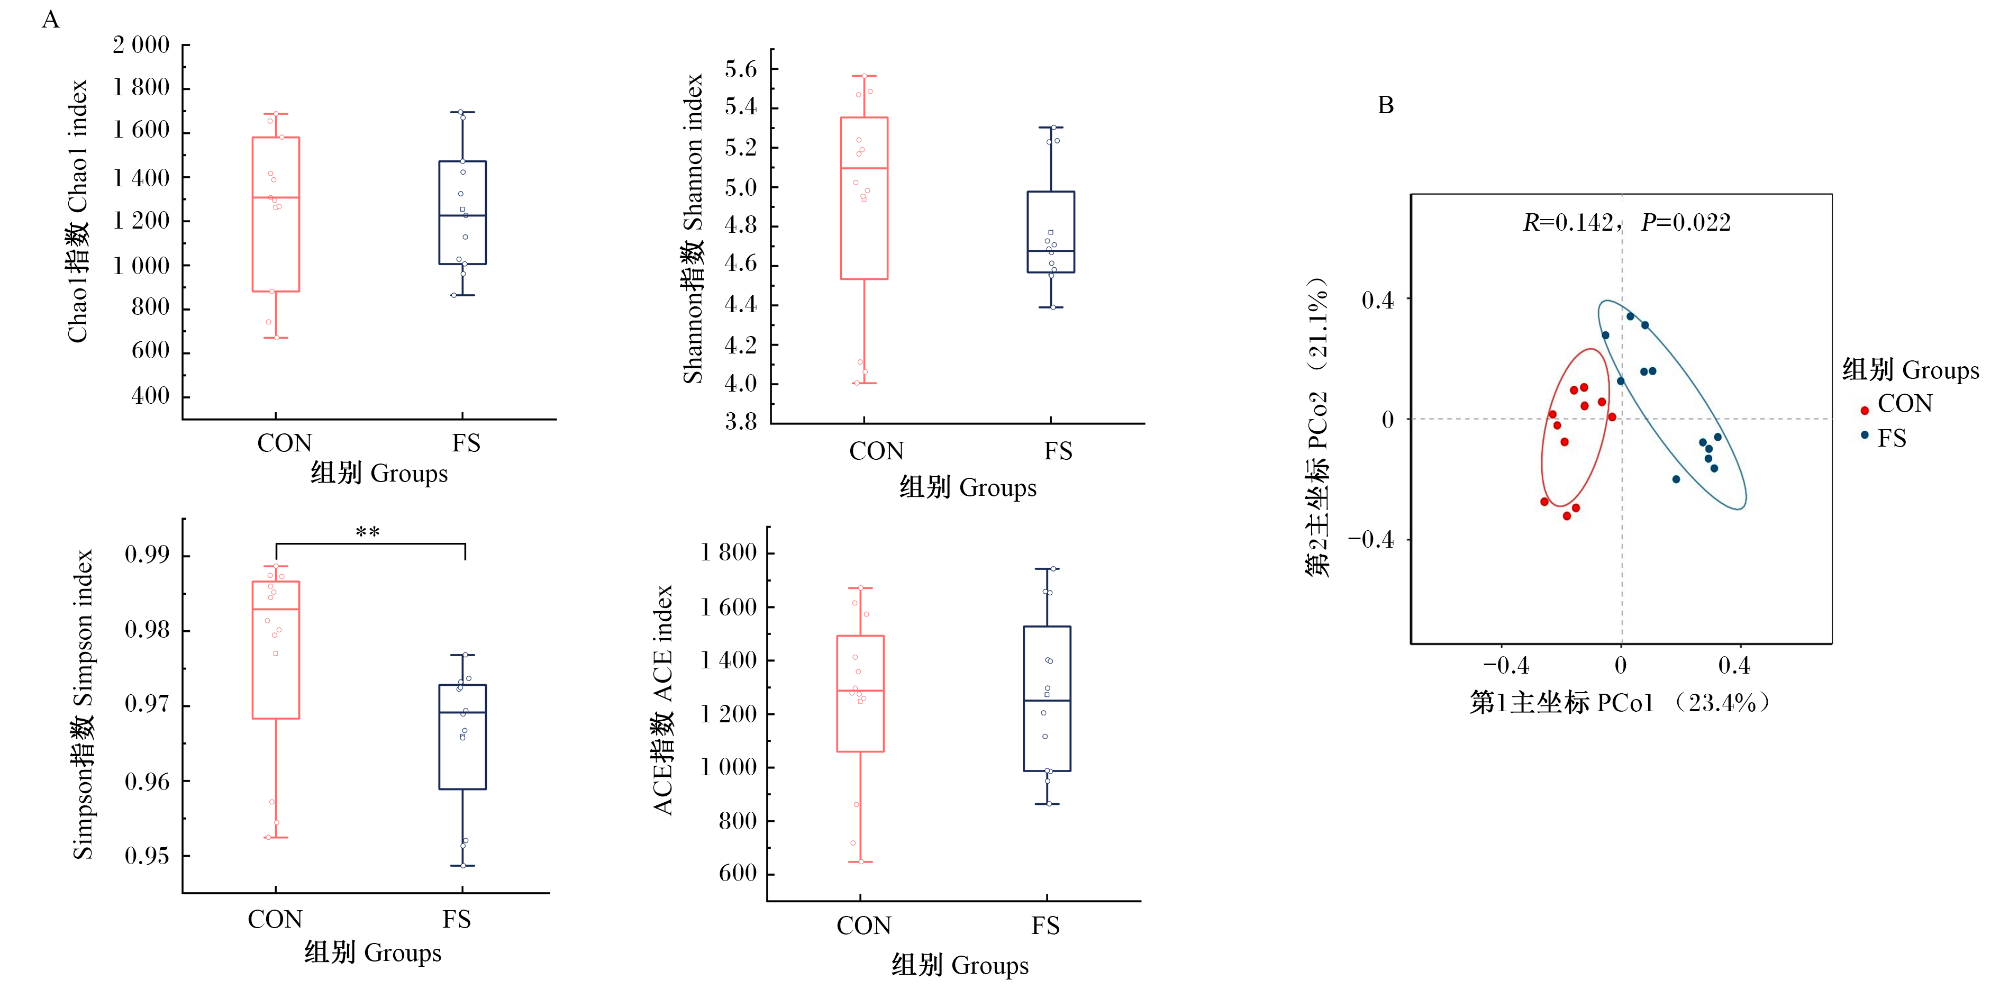
图1-A所示,α多样性分析结果表明,与CON组相比,FS组滩羊瘤胃微生物群落Simpson指数极显著降低(P<0.01),Shannon指数、Chao1指数和ACE指数无显著差异(P>0.05)。如图1-B所示,基于加权UniFrac距离的主坐标分析(PCoA)结果显示,2组间滩羊瘤胃微生物群落结构存在明显分离,相似性分析(ANOSIM)表明2组间瘤胃微生物群落β多样性差异显著(P<0.05)。
图1 饲粮添加发酵银柴胡对滩羊瘤胃微生物群落α多样性(A)和β多样性(B)的影响

**表示差异极显著(P<0.01)。

Fig.1 Effects of dietary supplementation with fermented Stellaria dichotoma var. lanceolata Bunge on α diversity (A) and β diversity (B) of rumen microbiota of Tan sheep

** indicated extremely significant difference (P<0.01).

2.5.2 菌群组成分析

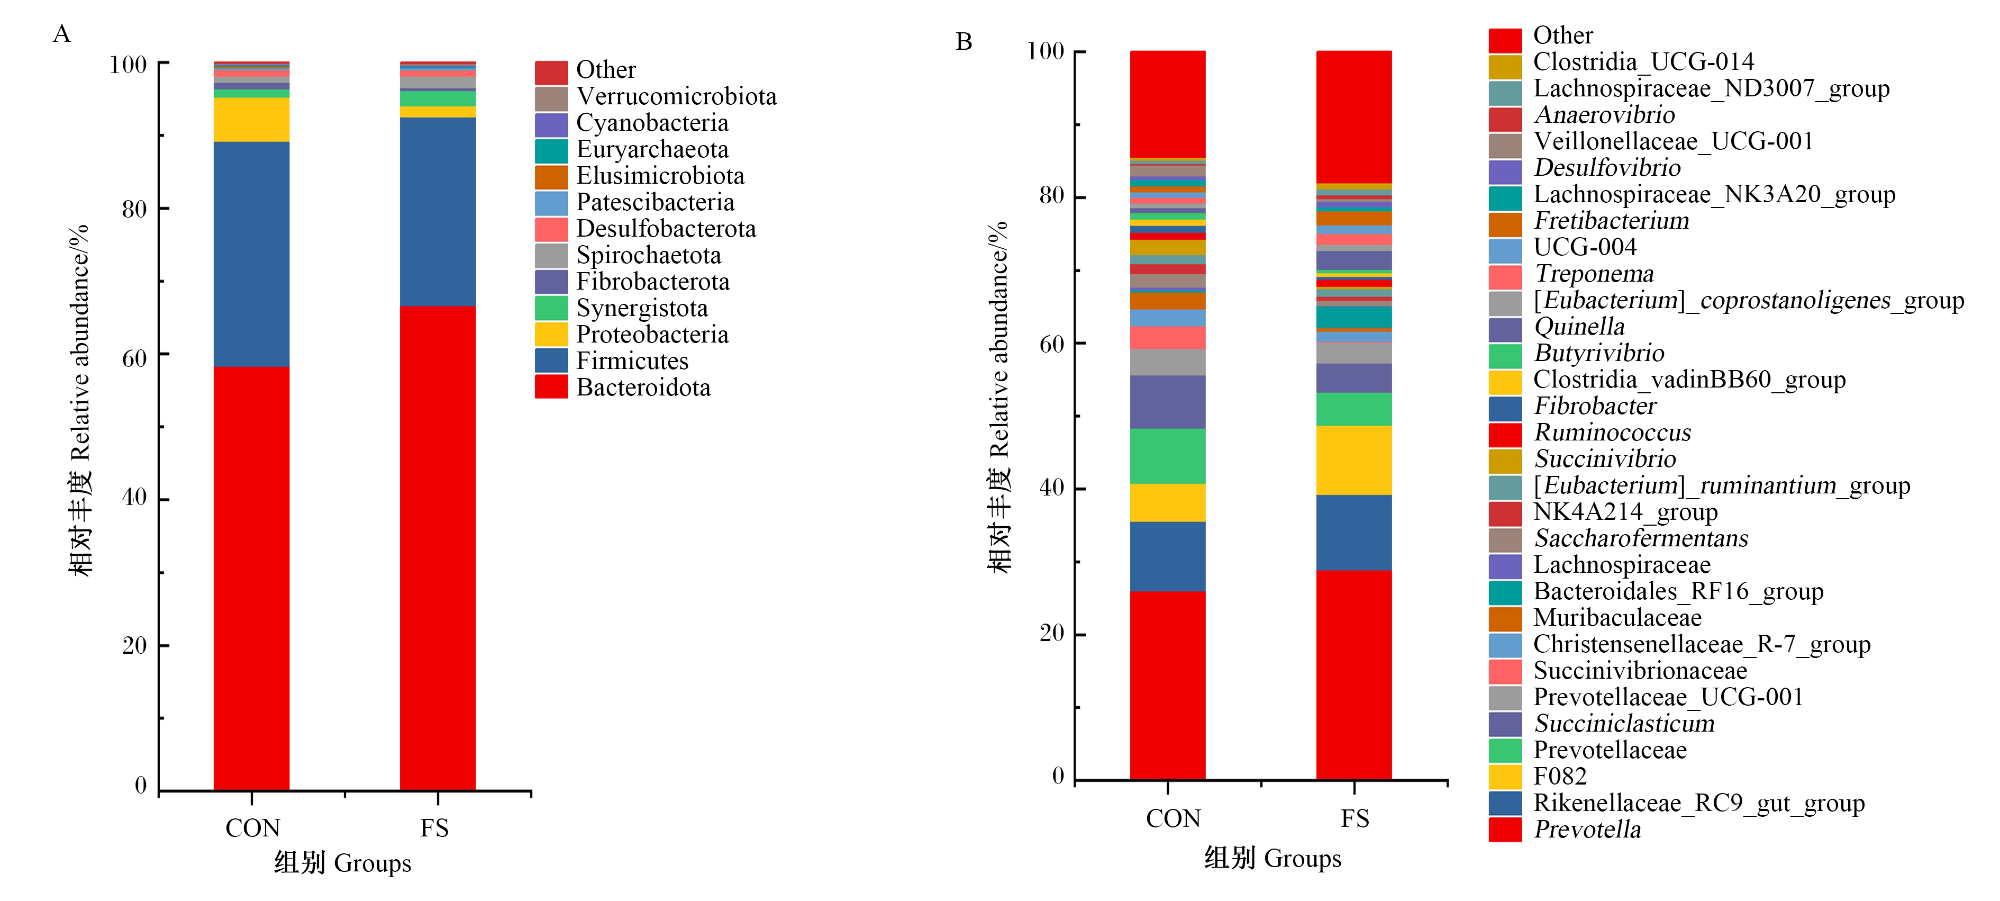
图2-A所示,在门水平上,拟杆菌门(Bacteroidota)和厚壁菌门(Firmicutes)为滩羊瘤胃菌群优势菌门;如图2-B所示,在属水平上,普雷沃氏菌属(Prevotella)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)和解琥珀酸菌属(Succiniclasticum)等为瘤胃优势菌属。
图2 饲粮添加发酵银柴胡对滩羊瘤胃微生物群落在门(A)和属(B)水平上组成的影响

Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Synergistota:互养菌门;Fibrobacterota:纤维杆菌门;Spirochaetota:螺旋体门;Desulfobacterota:脱硫杆菌门;Patescibacteria:髌骨菌门;Elusimicrobiota:迷踪菌门;Euryarchaeota:广古菌门;Cyanobacteria:蓝细菌门;Verrucomicrobiota:疣微菌门;Prevotella:普雷沃氏菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Prevotellaceae:普雷沃氏菌科;Succiniclasticum:解琥珀酸菌属;Prevotellaceae_UCG-001:普雷沃氏菌科UCG-001;Succinivibrionaceae:琥珀酸弧菌科;Christensenellaceae_R-7_group:克里斯滕森菌科R-7群;Muribaculaceae:鼠杆菌科;Bacteroidales_RF16_group:拟杆菌目RF16群;Lachnospiraceae:毛螺菌科;Saccharofermentans:糖发酵菌属;NK4A214_group:NK4A214群;[Eubacterium]_ruminantium_group:瘤胃真细菌群;Succinivibrio:琥珀酸弧菌属;Ruminococcus:瘤胃球菌属;Fibrobacter:纤维杆菌属;Clostridia_vadinBB60_group:梭菌纲vadinBB60群;Butyrivibrio:丁酸弧菌属;Quinella:奎因氏菌属;[Eubacterium]_coprostanoligenes_group:产粪甾醇真细菌群;Treponema:密螺旋体属;Fretibacterium:弗雷特杆菌属;Lachnospiraceae_NK3A20_group:毛螺菌科NK3A20群;Desulfovibrio:脱硫弧菌属;Veillonellaceae_UCG-001:韦荣氏菌科UCG-001;Anaerovibrio:厌氧弧菌属;Lachnospiraceae_ND3007_group:毛螺菌科ND3007群;Clostridia_UCG-014:梭菌纲UCG-014;Other:其他。

Fig.2 Effects of dietary supplementation with fermented Stellaria dichotoma var. lanceolata Bunge on composition of rumen microbiota at phylum (A) and genus (B) levels of Tan sheep

2.5.3 差异菌属分析

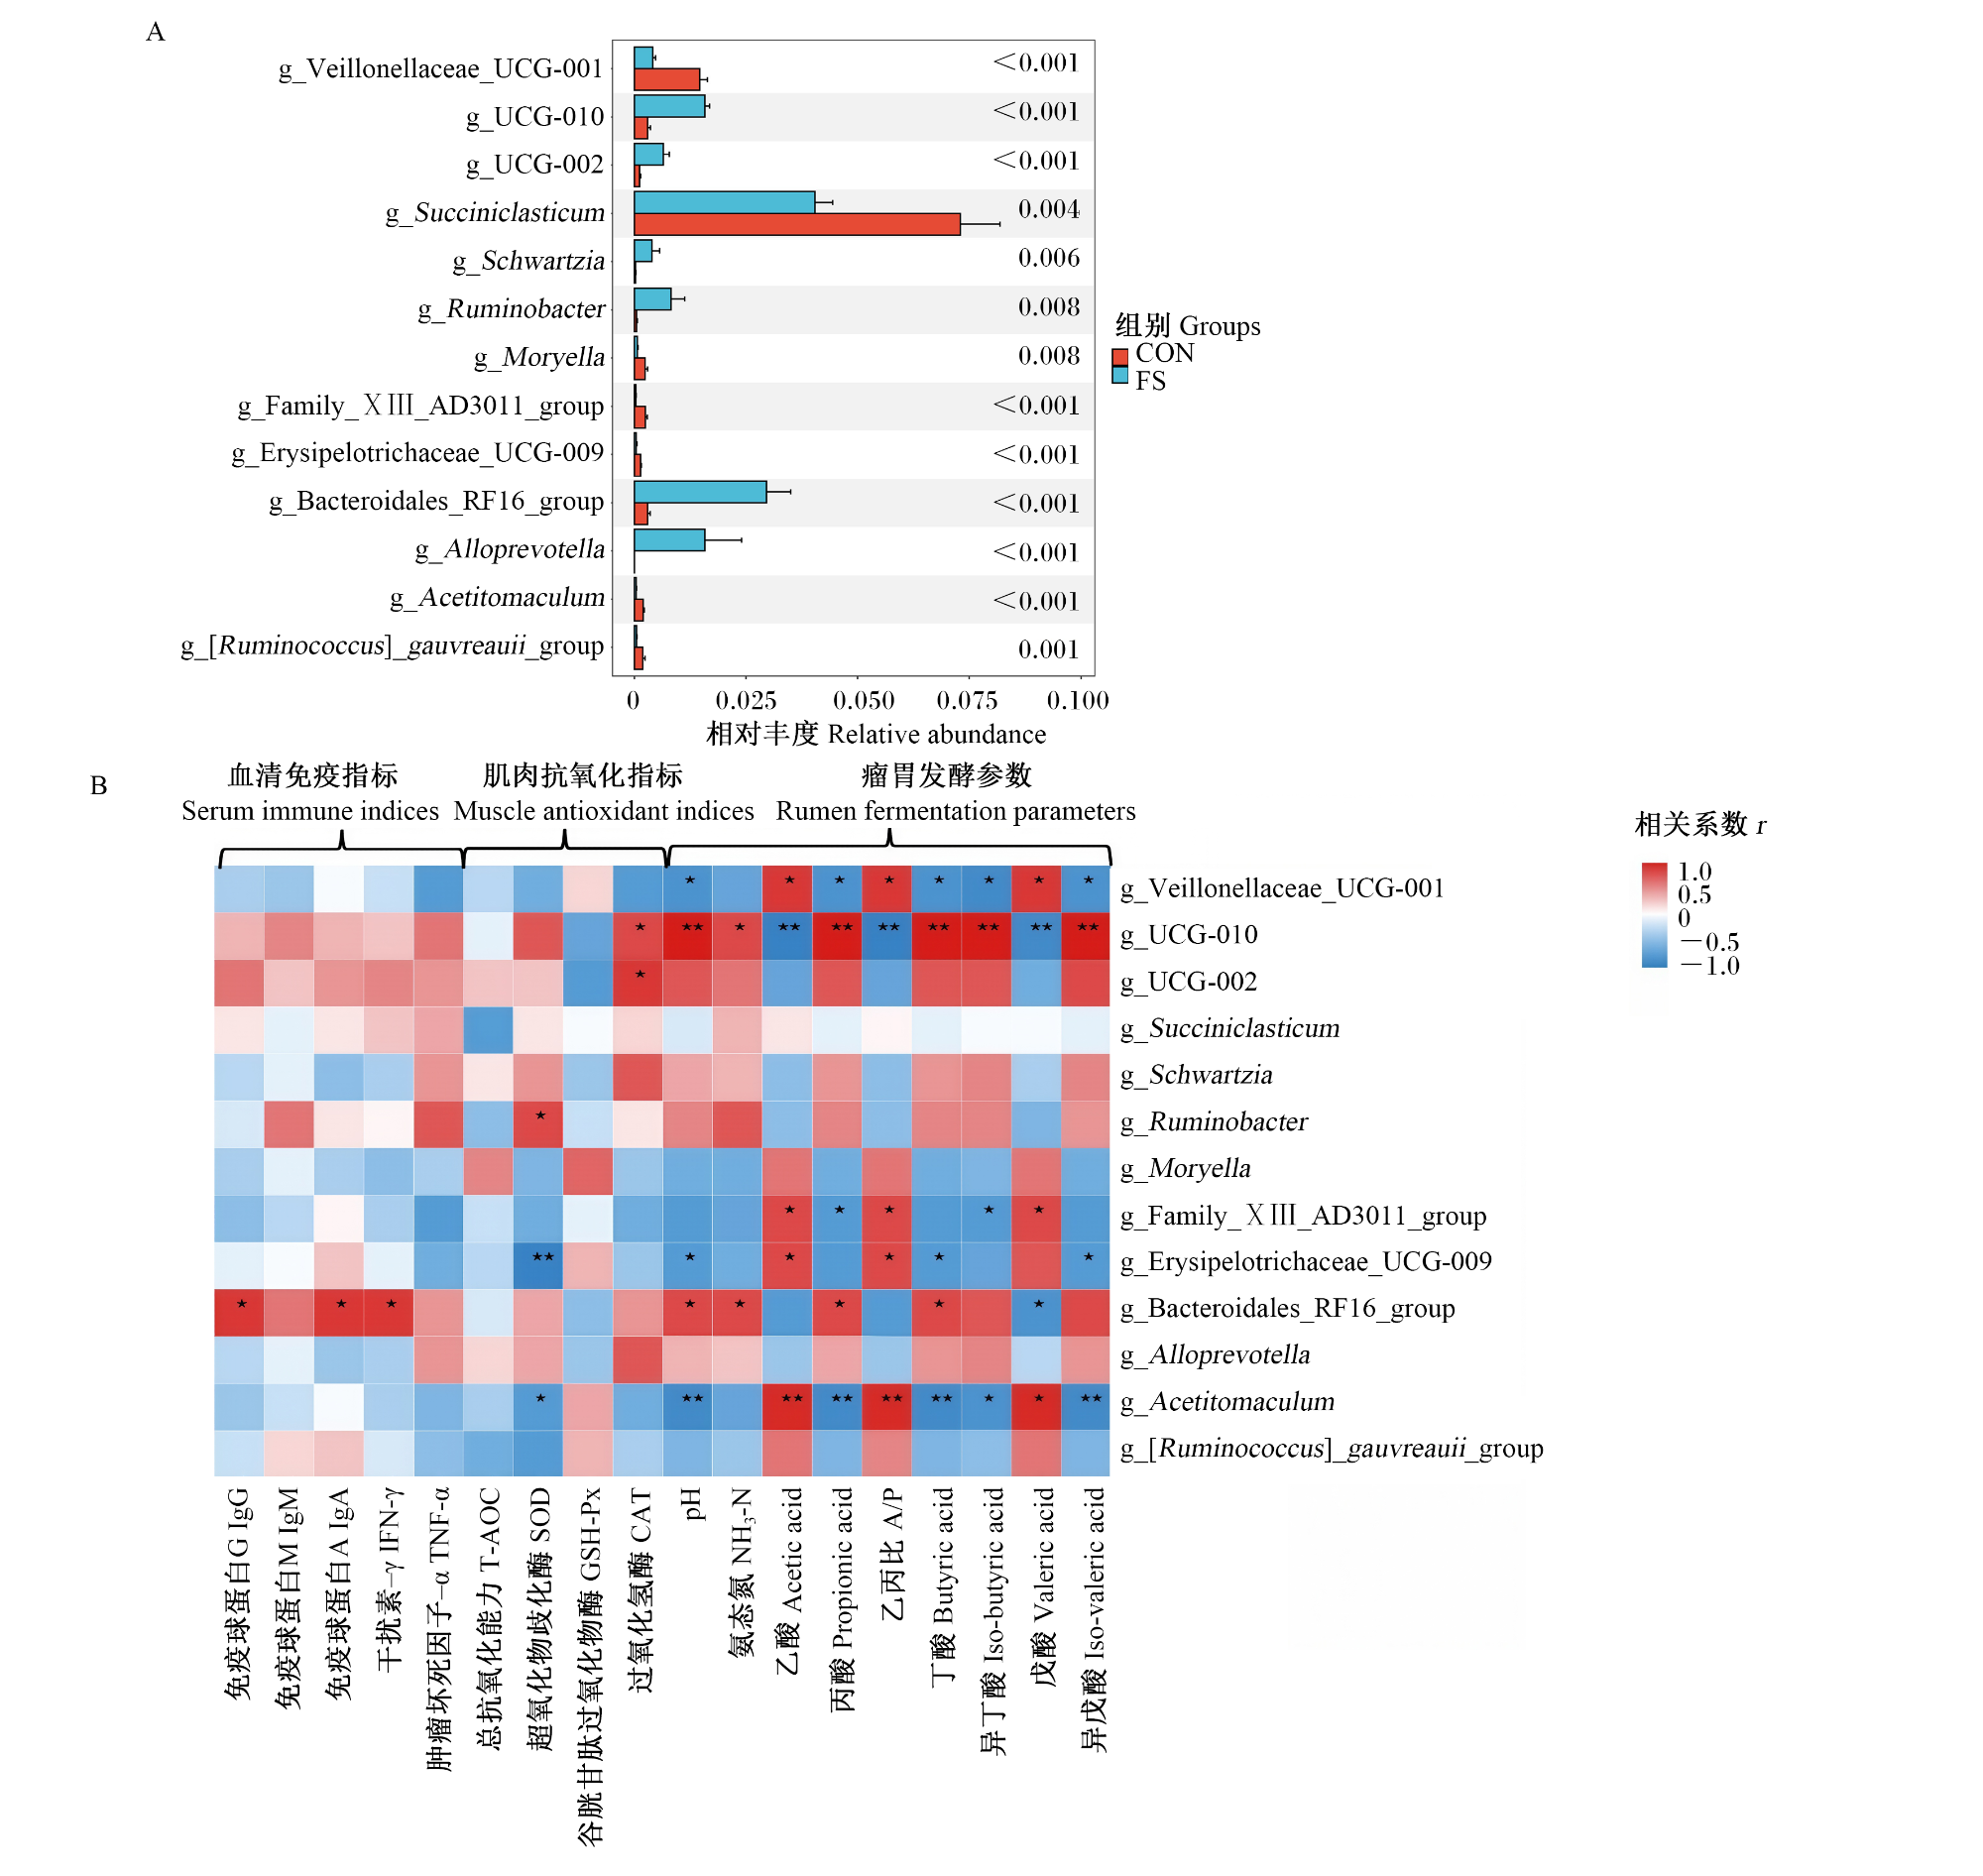
图3-A所示,与CON组相比,FS组瘤胃韦荣氏菌科UCG-001(Veillonellaceae_UCG-001)、解琥珀酸菌属、莫拉氏菌属(Moryella)、Family_ⅩⅢ_AD3011_group、丹毒丝菌科UCG-009(Erysipelotrichaceae_UCG-009)、聚乙酸菌属(Acetitomaculum)和高氏瘤胃球菌群([Ruminococcus]_gauvreauii_group)相对丰度极显著降低(P<0.01),瘤胃UCG-010、UCG-002、施氏菌属(Schwartzia)、瘤胃杆菌属(Ruminobacter)、拟杆菌目RF16群(Bacteroidales_RF16_group)和拟普雷沃氏菌属(Alloprevotella)相对丰度极显著提高(P<0.01)。
图3 滩羊瘤胃差异菌属(A)及其与血清免疫指标、肌肉抗氧化指标和瘤胃发酵参数的相关性热图(B)

Veillonellaceae_UCG-001:韦荣氏菌科UCG-001;Succiniclasticum:解琥珀酸菌属;Schwartzia:施氏菌属;Ruminobacter:瘤胃杆菌属;Moryella:莫拉氏菌属;Erysipelotrichaceae_UCG-009:丹毒丝菌科UCG-009;Bacteroidales_RF16_group:拟杆菌目RF16群;Alloprevotella:拟普雷沃氏菌属;Acetitomaculum:聚乙酸菌属;[Ruminococcus]_gauvreauii_group:高氏瘤胃球菌群。

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。* indicated significant correlation (P<0.05), and ** indicated extremely significant correlation (P<0.01).

Fig.3 Differential bacterial genera in rumen microbiota of Tan sheep (A) and correlation heatmap of these genera with serum immune indices, muscle antioxidant indices and rumen fermentation parameters (B)

2.6 滩羊血清免疫、肌肉抗氧化、瘤胃发酵参数与差异菌属相关性分析

图3-B所示,在血清免疫指标方面,滩羊瘤胃拟杆菌目RF16群相对丰度与血清IgG、IgA和IFN-γ含量呈显著正相关(P<0.05)。在肌肉抗氧化指标方面,瘤胃UCG-010和UCG-002相对丰度与背最长肌CAT活性呈显著正相关(P<0.05);背最长肌SOD活性与瘤胃瘤胃杆菌属相对丰度呈显著正相关(P<0.05),与瘤胃聚乙酸菌属和丹毒丝菌科UCG-009相对丰度呈显著或极显著负相关(P<0.05或P<0.01)。在瘤胃发酵参数方面,瘤胃韦荣氏菌科UCG-001相对丰度与瘤胃pH及丙酸、丁酸、异丁酸和异戊酸含量呈显著负相关(P<0.05),与瘤胃乙酸、戊酸含量及A/P呈显著正相关(P<0.05);瘤胃UCG-010相对丰度与瘤胃pH及NH3-N、丙酸、丁酸、异丁酸和异戊酸含量呈显著或极显著正相关(P<0.05或P<0.01),与瘤胃乙酸、戊酸含量及A/P呈极显著负相关(P<0.01);瘤胃Family_ⅩⅢ_AD3011_group相对丰度与瘤胃乙酸、戊酸含量及A/P呈显著正相关(P<0.05),与瘤胃丙酸和异丁酸含量呈显著负相关(P<0.05);瘤胃丹毒丝菌科UCG-009相对丰度与瘤胃乙酸含量和A/P呈显著正相关(P<0.05),与瘤胃pH及丁酸、异戊酸含量呈显著负相关(P<0.05);瘤胃拟杆菌目RF16群相对丰度与瘤胃pH及NH3-N、丙酸和丁酸含量呈显著正相关(P<0.05),与瘤胃戊酸含量呈显著负相关(P<0.05);瘤胃聚乙酸菌属相对丰度与瘤胃pH及丙酸、丁酸、异丁酸和异戊酸含量呈显著或极显著负相关(P<0.05或P<0.01),与瘤胃乙酸、戊酸含量及A/P呈显著或极显著正相关(P<0.05或P<0.01)。

3 讨论

3.1 饲粮添加发酵银柴胡对滩羊生长性能的影响

发酵处理是挖掘银柴胡饲用价值、提升其生物学效价的关键环节。菌酶协同发酵可有效破坏银柴胡致密的细胞壁结构,促进胞内甾醇、黄酮等活性物质的释放,显著提升其在动物体内的生物利用度[13];而未发酵的纤维素类中草药,其活性成分因受细胞壁束缚,在瘤胃中释放缓慢,易随食糜进入小肠而难以充分解离,导致其有效吸收剂量降低。同时,发酵过程还可产生有机酸、活性肽等次生代谢产物[14],在改善饲料适口性的同时进一步增强其生理调控作用。王旭东等[15]研究发现,在小尾寒羊饲粮中添加微生物发酵中草药提取残渣后,羔羊ADG较未发酵中草药组显著提高13.24%,饲料转化率也极显著高于未发酵中草药组。许向莉等[16]在泌乳母猪饲粮中添加1.5%发酵中草药复方,哺乳仔猪断奶个体重和ADG分别显著提高11.16%和12.53%,腹泻率降低67.60%;而未发酵组仔猪生长性能无显著改善,仅腹泻率略有下降。上述研究表明,发酵处理是激活中草药潜在活性、提升其饲用价值的关键技术路径。
除发酵工艺外,中草药添加剂本身的功效发挥还受动物品种、添加剂量以及基础饲粮组成等多种因素影响。研究表明,中草药添加剂可促进饲粮营养物质吸收,改善饲料利用率,在动物生产中应用广泛[17-18]。但其对生长性能的调控效应存在明显的品种特异性和剂量依赖性。Wang等[19]研究发现,黄芪添加剂可显著提高藏羊ADG,并降低F/G;Shan等[20]研究发现,经酿酒酵母和枯草芽孢杆菌发酵的中草药复方制剂能显著缓解热应激荷斯坦奶牛干物质采食量的下降,并提升产奶量;然而,Hao等[21]在广灵大尾公羔饲粮中分别添加5、10、15和20 g/kg黄芪根粉发现,仅10 g/kg剂量组ADG显著提高,高剂量反而会抑制生长性能;Zhong等[22]在乌珠穆沁公羔饲粮中添加黄芪根粉,也未观察到15和50 g/kg剂量对采食量、日增重和F/G的显著影响。上述研究结果提示,中草药添加剂的促生长效应受多重因素共同调控。
本研究中,饲粮添加发酵银柴胡对滩羊生长性能无显著改善作用,但显著提高了血清免疫球蛋白含量、增强了肌肉抗氧化能力并优化了瘤胃发酵模式,表明其在改善滩羊机体健康状况、提升瘤胃能量代谢效率方面具有积极作用。在现代滩羊舍饲养殖模式下,机体健康度的提升本身是重要的生产指标,可有效增强羔羊的机体抵抗力和抗应激能力,为其后期育肥及应对环境挑战奠定生理基础。而生长性能未与机体健康指标同步显著提升,可能与试验周期及羔羊生理阶段相关,滩羊生长期的能量分配遵循维持需要优先于生长需要的原则,发酵银柴胡的活性成分可能优先用于强化免疫机能、维持瘤胃稳态,其对生长性能的促进效应需在更长试验周期或育肥后期、应激期下才能显现。此外,后续还需结合生产实际开展系统的成本-效益分析,综合评估其加工成本、对养殖过程兽药使用量的影响及对肉品质提升带来的经济溢价,为发酵银柴胡在滩羊养殖中的产业化推广提供经济层面的依据。

3.2 饲粮添加发酵银柴胡对滩羊免疫功能的影响

血清抗体水平是评估体液免疫的重要指标,其中免疫球蛋白(IgA、IgG和IgM)在免疫系统中发挥核心作用[23]。中草药所含活性成分具有免疫增强功能,银柴胡富含甾醇类物质,以解热抗炎特性著称[5],其根部分离的α-菠甾醇、β-谷甾醇等化合物表现出显著的生物活性和促进健康的潜力[24]。研究发现,绵羊饲粮添加黄芪可提高血清白细胞介素、免疫球蛋白和TNF-α含量[19,25],添加蒙古冰草能增强羔羊免疫抗炎通路、糖和脂代谢以及脂肪组织相关基因表达,改善免疫功能[26]。然而,甾醇类物质被细胞壁包裹,不易释放,作用效果弱。而发酵中草药可以促进甾醇类物质的释放,提高其利用率。研究发现,发酵竹粉能够显著提高育肥猪血清IgA含量[27],植物乳杆菌发酵中草药残渣代替玉米青贮使荷斯坦小母牛血清IgA、IgG含量显著升高[28],热带假丝酵母和米曲霉共同发酵的银杏叶残渣显著提升断奶仔猪血清IgG、IgA和IgM含量[29],发酵枸杞渣显著提高滩羊血清IgA、IgM、IgG及球蛋白含量,上调趋化因子并激活白细胞介素-17、NOD样受体等免疫信号通路[30]。本研究中,饲粮添加发酵银柴胡显著提高滩羊血清IgA、IgG和IgM含量,同时降低与炎症反应相关的血清TNF-α含量。由此可见,发酵银柴胡可能通过抑制炎症信号通路,减少炎性细胞因子表达,进而促进免疫球蛋白分泌,最终提升滩羊免疫功能。

3.3 饲粮添加发酵银柴胡对滩羊抗氧化能力的影响

畜禽屠宰后,机体的抗氧化系统与自由基生成之间的动态平衡被打破,导致生肉在贮藏过程中极易发生氧化劣变[31]。肌肉内源性抗氧化物质通过清除自由基,能够有效抑制脂质过氧化和肌红蛋白氧化,从而维持肉品稳定的色泽,同时减少不饱和脂肪酸的氧化降解和肌肉汁液流失,保障肉品风味物质的保留和嫩度特性[32]。因此,提升宰后肌肉的抗氧化防御能力对维持生鲜肉品质具有关键作用[33]。现有研究表明,植物多酚类物质具有显著的抗氧化活性。银柴胡富含甾醇、皂苷、生物碱和黄酮等活性物质,具有抗菌、抗炎和抗氧化特性。研究发现,β-谷甾醇及其衍生物可通过氢转移反应中和ROS,形成稳定加合物以增强抗氧化能力[34],其对1,1-二苯基-2-三硝基苯肼(DPPH)和2,2'-联氮双(3-乙基苯并噻唑啉-6-磺酸)(ABTS)自由基的清除能力与强抗氧化剂α-生育酚相当[35]。本研究中,饲粮添加发酵银柴胡可显著提高滩羊背最长肌SOD活性,表明其能够增强肌肉抗氧化能力,该作用可能与发酵银柴胡中β-谷甾醇、黄酮等多种活性成分的协同贡献有关。
植物源黄酮类化合物的抗氧化作用,常与核因子E2相关因子2(Nrf2)信号通路的激活密切相关[36]。王一冰等[37]在黄羽肉鸡饲粮中添加300 mg/kg黄芩黄酮发现,肝脏中Nrf2和血红素加氧酶-1(HO-1)mRNA表达量显著上调,同时胸肌T-AOC和SOD活性显著提高,胸肌丙二醛含量显著降低。Nrf2是机体抗氧化防御的核心转录因子,可识别抗氧化反应元件(ARE),启动下游一系列抗氧化酶(SODCATGSH-Px等)和Ⅱ相解毒酶[HO-1、NAD(P)H醌脱氢酶1(NQO1)等]的表达[38]。本试验中FS组滩羊背最长肌SOD活性显著提升,背最长肌CAT活性呈上升趋势,背最长肌GSH-Px活性和T-AOC未发生显著变化,表明发酵银柴胡可能通过激活Nrf2信号通路调控抗氧化酶的表达[39];同时,其分子结构中的酚羟基可直接中和自由基,进一步提高机体抗氧化能力[40]。但不同抗氧化酶对Nrf2信号通路的响应程度、转录后调控及辅因子依赖存在差异[41],这也可能导致仅SOD活性表现出显著提升。未来研究可进一步测定Nrf2信号通路相关基因和蛋白的表达,以明确其调控分子机制。

3.4 饲粮添加发酵银柴胡对滩羊瘤胃发酵的影响

瘤胃发酵参数反映营养物质在瘤胃中的降解和利用效率。瘤胃pH是评估瘤胃环境稳定性和发酵活性的关键指标,其适宜范围为6.00~7.00,在此范围内纤维素分解菌活性最高,有利于纤维物质消化[42]。本试验中,2组滩羊瘤胃pH均处于正常范围内,且组间无显著差异,FS组仅表现出轻微升高趋势,表明发酵银柴胡的添加未引发瘤胃内酸性物质过度累积,不会导致瘤胃酸中毒,能有效维持滩羊瘤胃内环境的稳定。这一结果与发酵银柴胡的成分特性密切相关,其发酵后含有的多糖、黄酮等活性物质可调节瘤胃微生物区系平衡,避免单一产酸菌过度增殖,同时发酵过程中产生的弱碱性代谢产物可能对瘤胃pH起到一定缓冲作用,从而保障了瘤胃基础发酵环境的稳定[43]。VFA是瘤胃微生物发酵碳水化合物的主要终产物,也是反刍动物最主要的能量来源,其中乙酸、丙酸和丁酸约占VFA总量的95%[44]。本研究中,饲粮添加发酵银柴胡显著提高滩羊瘤胃丙酸含量并降低A/P,这与反刍动物饲粮中添加中草药添加剂的研究结果[45]一致。丙酸作为肝脏糖异生的关键底物,可满足反刍动物50%~60%的总能量需求,其含量的显著提升直接表明滩羊瘤胃发酵的能量转化效率得到优化,能为机体生长、代谢提供更多可利用的有效能量。A/P是反映瘤胃发酵类型和能量利用效率的重要指标,其数值与反刍动物能量供给效率呈负相关,A/P越低,表明瘤胃发酵向丙酸型转化越明显,能量利用效率越高[46]。本试验中,FS组瘤胃A/P呈降低趋势,进一步证实发酵银柴胡可调控滩羊瘤胃发酵类型,推动瘤胃发酵从乙酸型向更高效的丙酸型转变。NH3-N是瘤胃微生物降解饲粮蛋白质的产物,其含量反映瘤胃内蛋白质降解与微生物蛋白合成的动态平衡,适宜的NH3-N含量可保障瘤胃微生物的正常生长繁殖[47]。本试验中,2组间瘤胃NH3-N含量无显著差异,且均处于适宜范围内,表明发酵银柴胡的添加未改变滩羊瘤胃内蛋白质的降解与合成平衡,既不会因NH3-N含量过低导致微生物蛋白合成原料不足,也不会因NH3-N含量过高造成氮源浪费,有效保证了瘤胃氮代谢的稳态。
瘤胃微生物在饲粮消化和维持机体生理功能方面起着至关重要的作用,而饲粮是影响其组成的关键因素。基于16S rRNA基因测序分析,在α多样性方面,FS组滩羊瘤胃微生物群落Simpson指数(与微生物多样性负相关)极显著低于CON组,表明发酵银柴胡能够显著影响滩羊瘤胃微生物群落组成。β多样性PCoA分析表明,2组间瘤胃微生物群落明显分离。在门水平上,拟杆菌门和厚壁菌门为瘤胃优势菌门,前者主要参与非纤维植物成分的分解吸收,后者主导纤维素和半纤维素降解[48]。在属水平上,普雷沃氏菌属、理研菌科RC9肠道群和解琥珀酸菌属等为瘤胃优势菌属;同时,饲粮添加发酵银柴胡提高瘤胃普雷沃氏菌属相对丰度。普雷沃氏菌属可分泌纤维素降解酶,参与纤维、半纤维素、果胶和蛋白质的分解[49]。研究表明,解琥珀酸菌属与反刍动物饲料效率及生长性能改善相关[50],该菌属可以将琥珀酸转化为丙酸,提升能量供给和饲料利用率[51]。这表明发酵银柴胡可增强营养物质转化效率,优化瘤胃发酵。
相关性分析表明,滩羊瘤胃拟杆菌目RF16相对丰度与血清IgG、IgA和IFN-γ含量呈显著正相关,这与Luo等[52]和Wang等[53]研究中关于拟杆菌目菌属与宿主免疫调节的报道具有一致性。这可能由于拟杆菌目通过产生丙酸等短链脂肪酸增强肠道屏障功能,同时调节树突状细胞成熟促进免疫球蛋白分泌,并通过抑制促炎因子产生维持免疫稳态[54]。此外,瘤胃UCG-010和UCG-002相对丰度与背最长肌CAT活性呈显著正相关,瘤胃瘤胃杆菌属相对丰度与背最长肌SOD活性呈显著正相关,上述菌属主要参与瘤胃淀粉降解[55],通过分解淀粉产生丙酸、丁酸等短链脂肪酸,这些代谢产物可激活Nrf2/ARE信号通路,增强抗氧化酶表达,同时维持瘤胃微环境稳定,促进抗氧化物质吸收,从而提升肌肉抗氧化能力。瘤胃聚乙酸菌属相对丰度与瘤胃乙酸、戊酸含量及A/P呈正相关,与瘤胃丙酸、丁酸和异丁酸含量呈负相关。聚乙酸菌属可通过单糖代谢产生乙酸[56],本研究中饲粮添加发酵银柴胡降低其相对丰度与FS组瘤胃乙酸含量降低的结果相符。而瘤胃UCG-010相对丰度与丙酸、丁酸等VFA含量呈极显著正相关,表明其可能通过促进VFA生成,为滩羊提供更多能量及更健康的瘤胃环境。由此可见,饲粮添加发酵银柴胡能够通过调控瘤胃微生物群落改善瘤胃发酵,但关键功能菌及其作用机制仍需深入解析。
综上所述,本研究为发酵银柴胡作为功能性饲料添加剂在滩羊养殖中的应用奠定了理论基础,未来研究需进一步优化其添加剂量、添加时长,并在断奶、运输等高应激养殖场景中验证其功效,并深入解析其分子机制。

4 结论

在本试验条件下,饲粮添加发酵银柴胡虽未显著改善滩羊生长性能,但可增强机体免疫功能,提高肌肉抗氧化能力,并优化瘤胃发酵模式和微生物群落,显示出良好的饲用开发潜力。
[1]
杨攀平, 李惠侠, 胡亚美. 盐池滩羊肉品质特性及其潜在调控机理探讨[J]. 草业学报, 2025, 34(4):223-232.

DOI

YANG P P, LI H X, HU Y M. Exploration of meat quality characteristics of Yanchi Tan sheep and the potential regulatory mechanisms[J]. Acta Prataculturae Sinica, 2025, 34(4):223-232. (in Chinese)

[2]
郭帅, 杨慧超, 李瑞国, 等. 放牧与舍饲模式对滩羊肉品质、瘤胃环境及菌群结构的影响[J]. 西南农业学报, 2023, 36(8):1798-1807.

GUO S, YANG H C, LI R G, et al. Effects of grazing and housing feeding patterns on meat quality,rumen environment and microbiota structure of Tan sheep[J]. Southwest China Journal of Agricultural Sciences, 2023, 36(8):1798-1807. (in Chinese)

[3]
中华人民共和国农业农村部. 中华人民共和国农业农村部公告第194号[EB/OL].(2019-07-10)[2023-11-20].

Ministry of Agriculture and Rural Affairs of the People’s Republic of China. Announcement No. 194 of the Ministry of Agriculture and Rural Affairs of The People’s Republic of China[EB/OL].(2019-07-10)[2023-11-20]. in Chinese)

[4]
OLIJHOEK D W, HELLWING A L F, GREVSEN K, et al. Effect of dried oregano (Origanum vulgare L.) plant material in feed on methane production,rumen fermentation,nutrient digestibility,and milk fatty acid composition in dairy cows[J]. Journal of Dairy Science, 2019, 102(11):9902-9918.

DOI

[5]
BAE S J, CHOI J W, PARK B J, et al. Protective effects of a traditional herbal extract from Stellaria dichotoma var. lanceolata against Mycobacterium abscessus infections[J]. PLoS One, 2018, 13(11):e0207696.

DOI

[6]
ZHANG G, YUN X L, GAO Y F. Phytochemical constituents from Stellaria dichotoma var. lanceolata[J]. Chemistry of Natural Compounds, 2019, 55(1):135-137.

DOI

[7]
WEN Y L, YAN L P, CHEN C S. Effects of fermentation treatment on antioxidant and antimicrobial activities of four common Chinese herbal medicinal residues by Aspergillus oryzae[J]. Journal of Food and Drug Analysis, 2013, 21(2):219-226.

DOI

[8]
刘显军, 苏晴, 马旭东, 等. 菌酶协同发酵复方中草药对断奶仔猪生长性能及血清免疫、抗氧化和生长相关激素指标的影响[J]. 动物营养学报, 2024, 36(7):4233-4242.

DOI

LIU X J, SU Q, MA X D, et al. Effects of compound Chinese herbal medicine fermented with bacteria and enzymes on growth performance and serum immune,antioxidant and growth-related hormone indices of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(7):4233-4242. (in Chinese)

[9]
刘明远, 李林, 陈群, 等. 发酵中药渣对草原红牛生长性能和血清生化指标的影响[J]. 饲料研究, 2022, 45(17):1-4.

LIU M Y, LI L, CHEN Q, et al. Effect of fermented Chinese herbal dregs on growth performance and serum biochemical indexes of steppe red cattle[J]. Feed Research, 2022, 45(17):1-4. (in Chinese)

[10]
VAN SOEST P J. ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[11]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of the method for determining rumen fluid ammonia nitrogen concentration by colorimetry[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[12]
JIN W, LI Y, CHENG Y F, et al. The bacterial and archaeal community structures and methanogenic potential of the cecal microbiota of goats fed with hay and high-grain diets[J]. Antonie van Leeuwenhoek, 2018, 111(11):2037-2049.

DOI

[13]
祁帅, 张艳丽, 万永杰, 等. 菌酶协同发酵豆秸对湖羊生长性能、血清指标和瘤胃微生物的影响[J]. 草业学报, 2025, 34(5):189-201.

DOI

QI S, ZHANG Y L, WAN Y J, et al. Effects of soybean straw co-fermented with a bacterium-enzyme mixture on the growth performance,serum indexes,and rumen microorganisms of Hu sheep[J]. Acta Prataculturae Sinica, 2025, 34(5):189-201. (in Chinese)

[14]
张彩霞, 付文华, 李俊良, 等. 菌酶协同秸秆生物发酵饲料营养价值及瘤胃降解率研究[J]. 动物营养学报, 2024, 36(9):6038-6048.

DOI

ZHANG C X, FU W H, LI J L, et al. A study of nutritional value and rumen degradation rate of fermented stover feed by fungus and enzyme[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):6038-6048. (in Chinese)

DOI

[15]
王旭东, 李秉诚, 田秀娥, 等. 微生物发酵中草药提取残渣饲料添加剂对小尾寒羊饲喂效果评价[J]. 中国草食动物科学, 2019, 39(5):75-77.

WANG X D, LI B C, TIAN X E, et al. Evaluation of feeding effect of microbial fermented Chinese herbal medicine extraction residue feed additive on small-tailed Han sheep[J]. China Herbivore Science, 2019, 39(5):75-77. (in Chinese)

[16]
许向莉, 杨文静, 顾强文, 等. 发酵中草药对泌乳母猪及哺乳仔猪生长性能与免疫抗氧化功能的影响[J]. 河南农业科学, 2026, 55(3):135-143.

XU X L, YANG W J, GU Q W, et al. Effects of fermented Chinese herbal medicines on growth performance,immune and antioxidant functions of lactating sows and suckling piglets[J]. Journal of Henan Agricultural Sciences, 2026, 55(3):135-143. (in Chinese)

[17]
冉航, 朱声鑫, 刘婷, 等. 黄芪多糖粉对湖羊瘤胃体外发酵参数和微生物区系的影响[J]. 动物营养学报, 2025, 37(3):1880-1892.

DOI

RAN H, ZHU S X, LIU T, et al. Effects of Astragalus polysaccharide powder on rumen fermentation parameters and microflora of Hu sheep in vitro[J]. Chinese Journal of Animal Nutrition, 2025, 37(3):1880-1892. (in Chinese)

[18]
王怡冰, 张伟华, 李尧, 等. 复方中草药对湖羊生长性能及血清生化、免疫、抗氧化指标和代谢物的影响[J]. 动物营养学报, 2025, 37(8):5330-5341.

DOI

WANG Y B, ZHANG W H, LI Y, et al. Effects of compound Chinese herbal medicine on growth performance and serum biochemical,immune,antioxidant indexes and metabolites of Hu sheep[J]. Chinese Journal of Animal Nutrition, 2025, 37(8):5330-5341. (in Chinese)

[19]
WANG X J, DING L M, WEI H Y, et al. Astragalus membranaceus root supplementation improves average daily gain,rumen fermentation,serum immunity and antioxidant indices of Tibetan sheep[J]. Animal, 2021, 15(1):100061.

DOI

[20]
SHAN C H, GUO J J, SUN X S, et al. Effects of fermented Chinese herbal medicines on milk performance and immune function in late-lactation cows under heat stress conditions[J]. Journal of Animal Science, 2018, 96(10):4444-4457.

[21]
HAO X Y, WANG P J, REN Y S, et al. Effects of Astragalus membranaceus roots supplementation on growth performance,serum antioxidant and immune response in finishing lambs[J]. Asian-Australasian Journal of Animal Sciences, 2020, 33(6):965-972.

DOI

[22]
ZHONG R Z, YU M, LIU H W, et al. Effects of dietary Astragalus polysaccharide and Astragalus membranaceus root supplementation on growth performance,rumen fermentation,immune responses,and antioxidant status of lambs[J]. Animal Feed Science and Technology, 2012, 174(1/2):60-67.

DOI

[23]
杨振祥, 李林贵, 刘艳丰, 等. 妊娠中后期饲喂酵母培养物对初产母羊生产性能及血清生化、免疫和抗氧化指标的影响[J]. 动物营养学报, 2025, 37(4):2535-2545.

DOI

YANG Z X, LI L G, LIU Y F, et al. Effects of feeding yeast culture in mid- and late-pregnancy on production performance and serum biochemical,immune and antioxidant indexes of primiparous ewes[J]. Chinese Journal of Animal Nutrition, 2025, 37(4):2535-2545. (in Chinese)

[24]
LI Z K, WANG H, FENG L, et al. Comparative metabolomics provides novel insights into correlation between dominant habitat factors and constituents of Stellaria radix (Stellaria dichotoma L. var. lanceolata bge.)[J]. Frontiers in Plant Science, 2022, 13:1035712.

DOI

[25]
WANG X J, HU C S, DING L M, et al. Astragalus membranaceus alters rumen bacteria to enhance fiber digestion,improves antioxidant capacity and immunity indices of small intestinal mucosa,and enhances liver metabolites for energy synthesis in Tibetan sheep[J]. Animals, 2021, 11(11):3236.

DOI

[26]
JIAO D, LIANG Y P, ZHOU S S, et al. Supplementing diets with Agriophyllum squarrosum reduced blood lipids,enhanced immunity and anti-inflammatory capacities,and mediated lipid metabolism in Tan lambs[J]. Animals, 2022, 12(24):3486.

DOI

[27]
LIU Z Q, LI N, ZHOU X Q, et al. Effects of fermented bamboo powder supplementation on serum biochemical parameters,immune indices,and fecal microbial composition in growing-finishing pigs[J]. Animals, 2022, 12(22):3127.

DOI

[28]
XIE Y Q, CHEN Z J, WANG D Y, et al. Effects of fermented herbal tea residues on the intestinal microbiota characteristics of Holstein heifers under heat stress[J]. Frontiers in Microbiology, 2020, 11:1014.

DOI PMID

[29]
ZHOU H, WANG C Z, YE J Z, et al. Effects of dietary supplementation of fermented Ginkgo biloba L. residues on growth performance,nutrient digestibility,serum biochemical parameters and immune function in weaned piglets[J]. Animal Science Journal, 2015, 86(8):790-799.

DOI

[30]
ZHANG Y J, GUO Y S, LUO Y L, et al. Integrated metabolomics and transcriptome revealed the effect of fermented Lycium barbarum residue promoting Ovis aries immunity[J]. Frontiers in Immunology, 2022, 13:889436.

DOI

[31]
郑梦馨, 陈晓东, 张腱皓, 等. 哺乳期滩羔羊添加维生素A对生长性能及肉品质的影响[J]. 畜牧兽医学报, 2025, 56(10):5039-5049.

DOI

ZHENG M X, CHEN X D, ZHANG J H, et al. Effects of vitamin A supplementation in lactating Tan lambs on growth performance and meat quality[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(10):5039-5049. (in Chinese)

[32]
胡亦清, 郭贝贝, 杨明睿, 等. 植物多糖和葛根素对舍饲山羊生产性能、血清生化指标和肉品质的影响[J]. 动物营养学报, 2020, 32(12):5788-5794.

DOI

HU Y Q, GUO B B, YANG M R, et al. Effects of plant polysaccharide and puerarin on growth performance,serum biochemical indices and meat quality of captive goats[J]. Chinese Journal of Animal Nutrition, 2020, 32(12):5788-5794. (in Chinese)

[33]
华晶忠, 王正丹, 郝桐, 等. 复方中药添加剂对新吉林黑猪生产性能、肉品质、免疫及抗氧化性能的影响[J]. 中国畜牧杂志, 2024, 60(4):259-263.

HUA J Z, WANG Z D, HAO T, et al. Effects of compound Chinese herbal medicine additives on production performance,meat quality,immunity,and antioxidant capacity of New Jilin black pigs[J]. Chinese Journal of Animal Science, 2024, 60(4):259-263. (in Chinese)

[34]
FRAILE L, CRISCI E, CÓRDOBA L, et al. Immunomodulatory properties of beta-sitosterol in pig immune responses[J]. International Immunopharmacology, 2012, 13(3):316-321.

DOI PMID

[35]
CHAKRABORTY K, JOY M, RAOLA V K. Anti-inflammatory β-sitosterols from the Asiatic loop-root mangrove Rhizophora mucronata attenuate 5-lipoxygenase and cyclooxygenase-2 enzymes[J]. Steroids, 2021, 172:108860.

DOI

[36]
高文韩, 邵广, 苗人方, 等. 过瘤胃二十二碳六烯酸对奶牛生产性能、血清指标及后肠道菌群的影响[J]. 动物营养学报, 2026, 38(3):2015-2029.

DOI

GAO W H, SHAO G, MIAO R F, et al. Effects of rumen-protected docosahexaenoic acid on performance,serum indices and hindgut microbiota of dairy cows[J]. Chinese Journal of Animal Nutrition, 2026, 38(3):2015-2029. (in Chinese)

[37]
王一冰, 牛开元, HASSAN M, 等. 饲粮中添加黄芩黄酮对黄羽肉鸡生长性能、肉品质和抗氧化能力的影响[J]. 动物营养学报, 2026, 38(2):1015-1024.

DOI

WANG Y B, NIU K Y, HASSAN M, et al. Effects of dietary supplementation with Scutellaria flavonoids on growth performance,meat quality and antioxidant capacity of yellow-feathered broilers[J]. Chinese Journal of Animal Nutrition, 2026, 38(2):1015-1024. (in Chinese)

[38]
韩民兴. n-3不饱和脂肪酸通过激活Nrf2-ARE信号通路对6-OHDA及α-synuclein帕金森病模型小鼠的保护作用[D]. 硕士学位论文. 济南: 山东大学, 2017.

HAN M X. Omega-3 polyunsaturated fatty acids protect against 6-OHDA and α-synuclein-induced dopaminergic neurodegeneration by activating Nrf2/ARE pathway[D]. Master’s Thesis. Ji’nan: Shandong University, 2017. (in Chinese)

[39]
DAI C Q, ZHEN F S, YU L Z, et al. Puerarin alleviates oxaliplatin-induced neuropathic pain by promoting Nrf2/GPX4-mediated antioxidative response[J]. PLoS One, 2024, 19(8):e0308872.

DOI

[40]
ZHOU H K, LI X Z, SHANG Y X, et al. Radical scavenging activity of puerarin:a theoretical study[J]. Antioxidants, 2019, 8(12):590.

DOI

[41]
彭思敏. 甘蓝型油菜籽油组成特征及其内源性脂质伴随物抗氧化机理研究[D]. 博士学位论文. 长沙: 湖南农业大学, 2022.

PENG S M. Characterization of Brassica napus L. seed oil and the antioxidant mechanism of endogenous lipid concomitants[D].Ph.D.Thesis. Changsha: Hunan Agricultural University, 2022. (in Chinese)

[42]
VIENNASAY B, WANAPAT M. Strategic supplementation of Flemingia silage to enhance rumen fermentation efficiency,microbial protein synthesis and methane mitigation in beef cattle[J]. BMC Veterinary Research, 2020, 16(1):480

DOI

[43]
惠浩阳. 残次红枣对羔羊生长发育、血液理化指标、和肉质的影响[D]. 硕士学位论文. 阿拉尔: 塔里木大学, 2022.

HUI H Y. Effects of residual red dates on growth and development,blood physicochemical indexes and meat quality of lambs[D]. Master’s Thesis. Alar: Tarim University, 2022. (in Chinese)

[44]
ASCHENBACH J R, PENNER G B, STUMPFF F, et al. Ruminant nutrition symposium:role of fermentation acid absorption in the regulation of ruminal pH[J]. Journal of Animal Science, 2011, 89(4):1092-1107.

DOI

[45]
ZHONG R Z, XIANG H, CHENG L, et al. Effects of feeding garlic powder on growth performance,rumen fermentation,and the health status of lambs infected by gastrointestinal nematodes[J]. Animals, 2019, 9(3):102.

DOI

[46]
程冠文. 日粮碳水化合物类型调控瘤胃发酵乙/丙比的机制研究[D]. 硕士学位论文. 泰安: 山东农业大学, 2019.

CHENG G W.Study on the mechanism of dietary carbohydrate types regulating C2/C3 ratio in rumen fermentation[D].Master’s Thesis. Tai’an: Shandong Agricultural University, 2019. (in Chinese)

[47]
BENCHAAR C, ROMERO-PÉREZ G A, CHOUINARD P Y, et al. Supplementation of increasing amounts of linseed oil to dairy cows fed total mixed rations:effects on digestion,ruminal fermentation characteristics,protozoal populations,and milk fatty acid composition[J]. Journal of Dairy Science, 2012, 95(8):4578-4590.

DOI

[48]
WANG M Y, WU L F, GUO Y Q, et al. Effects of fermented herbal tea residue on meat quality,rumen fermentation parameters and microbes of black goats[J]. AMB Express, 2023, 13(1):106.

DOI

[49]
HUANG C, GE F, YAO X X, et al. Microbiome and metabolomics reveal the effects of different feeding systems on the growth and ruminal development of yaks[J]. Frontiers in Microbiology, 2021, 12:682989.

DOI

[50]
AUFFRET M D, STEWART R D, DEWHURST R J, et al. Identification of microbial genetic capacities and potential mechanisms within the rumen microbiome explaining differences in beef cattle feed efficiency[J]. Frontiers in Microbiology, 2020, 11:1229.

DOI PMID

[51]
VAN GYLSWYK N O. Succiniclasticum ruminis gen. nov.,sp. nov.,a ruminal bacterium converting succinate to propionate as the sole energy-yielding mechanism[J]. International Journal of Systematic Bacteriology, 1995, 45(2):297-300.

DOI

[52]
LUO T, LI Y T, ZHANG W Y, et al. Rumen and fecal microbiota profiles associated with immunity of young and adult goats[J]. Frontiers in Immunology, 2022, 13:978402.

DOI

[53]
WANG B, LUO H L. Effects of mulberry leaf silage on antioxidant and immunomodulatory activity and rumen bacterial community of lambs[J]. BMC Microbiology, 2021, 21(1):250.

DOI PMID

[54]
BÄCKHED F, DING H, WANG T, et al. The gut microbiota as an environmental factor that regulates fat storage[J]. Proceedings of the National Academy of Sciences, 2004, 101(44):15718-15723.

DOI

[55]
ZHOU R, WU J P, ZHANG L P, et al. Effects of oregano essential oil on the ruminal pH and microbial population of sheep[J]. PLoS One, 2019, 14(5):e0217054.

DOI

[56]
KOIKE S, KOBAYASHI Y. Fibrolytic rumen bacteria:their ecology and functions[J]. Asian-Australasian Journal of Animal Sciences, 2009, 22(1):131-138.

DOI

文章导航

/