研究论文

高低能量水平饲粮对山羊生长性能和皮下脂肪脂质代谢的影响

  • 王珂洁 , 1 ,
  • 邱时秀 2, * ,
  • 王之盛 1 ,
  • 薛白 1 ,
  • 王立志 1 ,
  • 胡瑞 1 ,
  • 肖鉴鑫 1 ,
  • 姜雅慧 1 ,
  • 邹华围 1 ,
  • 许祯莹 , 2, ** ,
  • 彭全辉 , 1, **
展开
  • 1 四川农业大学动物营养研究所, 教育部抗病营养重点实验室, 成都 611130
  • 2 成都市农林科学院, 成都 611130
** 许祯莹,正高级畜牧师,E-mail: ;
彭全辉,副教授,硕士生导师,E-mail:

* 同等贡献作者

王珂洁(1998—),女,河南驻马店人,硕士研究生,动物营养与饲料专业。E-mail:

Office editor: 田艳明

收稿日期: 2026-01-12

  网络出版日期: 2026-09-12

基金资助

四川省科技教育联合基金(2025NSFSC2127)

国家现代农业产业技术体系四川肉羊创新团队(SCCXTD-2024-14)

成都市科技局重点研发支撑计划(2025-YF05-00548-SN)

Effects of High- and Low-Energy Level Diets on Growth Performance and Lipid Metabolism in Subcutaneous Fat of Goats

  • WANG Kejie , 1 ,
  • QIU Shixiu 2 ,
  • WANG Zhisheng 1 ,
  • XUE Bai 1 ,
  • WANG Lizhi 1 ,
  • HU Rui 1 ,
  • XIAO Jianxin 1 ,
  • JIANG Yahui 1 ,
  • ZOU Huawei 1 ,
  • XU Zhenying , 2, ** ,
  • PENG Quanhui , 1, **
Expand
  • 1 Key Laboratory of Animal Disease-Resistance Nutrition, Ministry of Education, Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Chengdu Academy of Agriculture and Forestry Sciences, Chengdu 611130, China
** XU Zhenying, senior animal husbandry engineer, E-mail: ;
PENG Quanhui, associate professor, E-mail:

* Contributed equally

Received date: 2026-01-12

  Online published: 2026-09-12

摘要

本试验旨在探究高低能量水平饲粮对山羊生长性能和皮下脂肪脂质代谢的影响。选取20只健康状况良好、体重[(19.36±0.20) kg]相近的4~6月龄川中黑山羊,随机分为2组,每组10个重复,每个重复1只羊。2组饲粮粗蛋白质含量均设定为14%;同时,低能组饲粮代谢能为9.20 MJ/kg,高能组饲粮代谢能为11.63 MJ/kg。预试期14 d,正试期60 d。结果表明:1)与低能组相比,高能组终末体重、平均日增重和平均日采食量均显著提高(P<0.05),料重比显著降低(P<0.05)。2)与低能组相比,高能组血清总胆固醇、高密度脂蛋白胆固醇和尿素氮含量显著提高(P<0.05)。3)与低能组相比,高能组皮下脂肪细胞数量显著减少(P<0.05),脂质染色阳性面积率显著提高(P<0.05)。4)与低能组相比,高能组皮下脂肪棕榈酸和饱和脂肪酸含量显著提高(P<0.05),肉豆蔻油酸、油酸、花生四烯酸和单不饱和脂肪酸(MUFA)含量显著降低(P<0.05)。5)皮下脂肪脂质组学分析共鉴定出1 600种脂质分子,包括708种甘油三酯(TG)、187种磷脂酰胆碱(PC)、126种甘油二酯(DG)、68种神经酰胺(Cer)和16种磷脂酰乙醇胺(PE)等;以变量投影重要性(VIP)>1、P<0.01且差异倍数(FC)≥2.0或≤0.5为筛选标准,共筛选出42种差异脂质;其中,与低能组相比,高能组有7种脂质上调[包括6种TG和1种磷脂酰丝氨酸(PS)],35种脂质下调[包括15种TG、5种PC、6种PE、2种鞘磷脂(SM)、4种甲基磷脂酰胆碱(MePC)和3种双甲基磷脂酸(BisMePA)]。综上所述,在本试验条件下,提高饲粮能量水平可以提高山羊生长性能,但降低了皮下脂肪中油酸、花生四烯酸和MUFA含量;同时,高能组大部分TG分子及PC、PE等磷脂类分子下调,表明提高饲粮能量水平对山羊肉品质及人类膳食健康具有不利影响。

本文引用格式

王珂洁 , 邱时秀 , 王之盛 , 薛白 , 王立志 , 胡瑞 , 肖鉴鑫 , 姜雅慧 , 邹华围 , 许祯莹 , 彭全辉 . 高低能量水平饲粮对山羊生长性能和皮下脂肪脂质代谢的影响[J]. 动物营养学报, 2026 , 38(9) : 6799 -6813 . DOI: 10.12418/CJAN2026.544

Abstract

This experiment was conducted to explore the effects of high- and low-energy level diets on growth performance and lipid metabolism in subcutaneous fat of goats. Twenty Chuanzhong black goats of 4 to 6-month-old with good health and similar body weight of (19.36±0.20) kg were selected and randomly divided into 2 groups, with 10 replicates in each group and 1 goat in each replicate. The crude protein content in diets in both groups was set at 14%. Meanwhile, the dietary metabolizable energy of the low-energy group was 9.20 MJ/kg, and that of the high-energy group was 11.63 MJ/kg. The pre-experiment lasted for 14 days and the formal experiment lasted for 60 days. The results showed as follows: 1) compared with the low-energy group, the final body weight, average daily gain and average daily feed intake in the high-energy group were significantly increased (P<0.05), and the feed-to-gain ratio was significantly decreased (P<0.05). 2) Compared with the low-energy group, the contents of serum total cholesterol, high-density lipoprotein cholesterol, and urea nitrogen in the high-energy group were significantly increased (P<0.05). 3) Compared with the low-energy group, the number of subcutaneous fat cells in the high-energy group was significantly decreased (P<0.05), and the positive area rate of lipid staining was significantly increased (P<0.05). 4) Compared with the low-energy group, the contents of palmitic acid and saturated fatty acids in subcutaneous fat in the high-energy group were significantly increased (P<0.05), while the contents of myristoleic acid, oleic acid, arachidonic acid and monounsaturated fatty acid (MUFA) were significantly decreased (P<0.05). 5) Subcutaneous fat lipidomics analysis identified a total of 1 600 lipid molecules, including 708 kinds of triglyceride (TG), 187 kinds of phosphatidylcholine (PC), 126 kinds of diglyceride (DG), 68 kinds of ceramide (Cer), and 16 kinds of phosphatidylethanolamine (PE), etc. Taking the variable importance in projection (VIP)>1, P<0.01 and fold change (FC) ≥2.0 or ≤0.5 as the screening criteria, a total of 42 differential lipids were screened out. Among them, compared with the low-energy group, the high-energy group had 7 lipids upregulated [including 6 kinds of TG and 1 kind of phosphatidylserine (PS)], and 35 lipids downregulated [including 15 kinds of TG, 5 kinds of PC, 6 kinds of PE, 2 kinds of sphingomyelin (SM), 4 kinds of methylphosphatidylcholine (MePC) and 3 kinds of bis-methyl phosphatidic acid (BisMePA)]. In conclusion, under the conditions of this experiment, increasing the dietary energy level can enhance the growth performance of goats, but it reduces the contents of oleic acid, arachidonic acid and MUFA in subcutaneous fat. Meanwhile, most of the TG molecules and phospholipid molecules such as PC and PE in the high-energy group are downregulated, indicating that increasing the dietary energy level has adverse effects on the meat quality of goat and human dietary health.

羊肉因其独特的营养价值和风味特性,在全球范围内被广泛生产和消费。据国家统计局数据显示,我国羊肉产量逐年增长,至2024年已达520万t。然而,随着生活水平的提高,消费者对羊肉的需求正逐步向优质化方向转变。影响羊肉品质的因素众多,包括动物品种、月龄、性别以及饲粮营养调控等,其中饲粮营养调控对肉品质的形成具有尤为关键的作用[1]
饲粮能量是动物最基本的营养需求之一,饲粮养分消化利用率、动物生长性能和胴体质量与饲粮提供的能量水平密切相关[2]。饲粮能量不仅支持动物基本的维持和生长,还促进肌肉和脂肪组织的形成,这两者在决定肉质和肉品等级方面起着至关重要的作用[3-5]。饲粮能量不足会降低饲料效率和动物生长速度,损害免疫功能;而过多的能量摄入会导致营养物质的浪费以及不必要的脂肪堆积,并增加酸中毒和瘤胃功能障碍等风险[1]
脂肪组织广泛分布于山羊机体的不同部位,在维持机体代谢稳态平衡中发挥着关键作用。脂肪组织通常主要分布于皮下、肾脏周围、肌肉间及尾部等区域。其中,皮下脂肪分布最为广泛,且与胴体特性(如肌内脂肪含量、保水性和风味等)密切相关[6]。此外,畜禽肉中的脂肪酸含量和种类是影响其感官特性(如嫩度、色泽及蒸煮损失)的关键因素;同时,脂肪酸组成也是评价肉类营养价值的重要指标[7-8]。因此,研究皮下脂肪的脂肪酸组成对评价羊肉肉质具有重要意义。
脂质组学作为代谢组学的重要分支,是研究脂质代谢及其相关通路的有效手段,其能够系统解析脂质分子的组成、结构和功能信息。随着脂质组学技术的不断发展,研究者日益关注不同动物肌肉和脂肪组织中脂质的动态变化。Zhang等[9]研究发现,随着饲粮蛋白质水平的降低,皮下脂肪中甘油三酯(triglyceride,TG)和甘油二酯(diglyceride,DG)含量随之上升,显示脂肪酸合成与酯化过程之间存在密切联系。Li等[10]探讨了肌内脂肪含量对湖羊肌肉脂质分子及风味的影响,结果显示随着肌内脂肪含量的升高,TG和DG含量也相应提高,进而影响羊肉的风味特征。据报道,基于质谱的非靶向脂质组学分析,可有效区分来自不同地理来源(美国、日本和澳大利亚)与饲养模式(有机牛肉、安格斯牛肉、和牛牛肉及常规牛肉)的牛肉样本[11]。这些研究共同印证了脂质组学在肉品科学中的可靠性和广阔应用前景。
迄今为止,饲粮能量水平对皮下脂肪脂肪酸组成和脂质代谢的影响鲜有报道。皮下脂肪沉积和脂肪酸组成与肉的可食用性密切相关,本试验通过对比高低能量水平饲粮对山羊生长性能和皮下脂肪脂肪酸谱的影响,并结合非靶向脂质组学手段分析其脂质代谢的差异特征,旨在挖掘饲粮能量水平对皮下脂肪脂肪酸组成的影响,为山羊肉品质研究提供参考。

1 材料与方法

1.1 伦理声明

本研究使用的试验动物和试验设计方案已通过四川农业大学动物伦理委员会批准(伦理批准号:20230534)。

1.2 试验设计和饲养管理

本试验于四川农业大学雅安教学科研基地开展。选取20只健康状况良好、体重[(19.36±0.20) kg]相近的4~6月龄川中黑山羊,随机分为2组,每组10个重复,每个重复1只羊。2组饲粮粗蛋白质含量均设定为14%;同时,低能组饲粮代谢能为9.20 MJ/kg,高能组饲粮代谢能为11.63 MJ/kg。饲粮配方参照《肉羊营养需要量》(NY/T 816—2021)中体重20 kg、日增重100 g/d肉羊的营养需要标准设计,其组成及营养水平见表1。预试期14 d,正试期60 d。
试验羊单栏饲养,采用全混合日粮(TMR)饲喂,每日09:00和16:00各饲喂1次,自由采食和饮水。试验期间每日晨饲前根据前1日采食量情况调整投喂量,并准确记录每日采食量。
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis)

项目
Items
低能组
Low-energy
group
高能组
High-energy
group
原料Ingredients
苜蓿干草Alfalfa hay 30.00 15.00
稻草秸秆Rice straw 30.00 15.00
玉米Corn 17.60 44.75
麦麸Wheat bran 5.00 7.30
豆粕Soybean meal 5.60 5.60
棉籽粕Cottonseed meal 5.00 5.00
菜籽粕Rapeseed meal 4.00 4.00
碳酸钙CaCO3 0.75
磷酸氢钙CaHPO4 0.30 0.10
碳酸氢钠NaHCO3 1.00 1.00
食盐NaCl 0.50 0.50
预混料Premix1) 1.00 1.00
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 9.20 11.63
粗蛋白质CP 13.95 14.36
粗脂肪EE 2.90 3.76
中性洗涤纤维NDF 56.87 46.93
酸性洗涤纤维ADF 29.54 16.46
钙Ca 0.50 0.53
磷P 0.24 0.28

1)预混料为每千克饲粮提供 The premix provided per kilogram of diets:VA 6 000 IU,VD3 1 200 IU,VE 70 IU,Fe (as ferrous sulfate) 50 mg,Cu (as copper sulfate) 8 mg,Zn (as zinc sulfate) 60 mg,Mn (as manganese sulfate) 50 mg,Se (as sodium selenite) 0.2 mg,I (as potassium iodide) 0.5 mg,Co (as cobalt sulfate) 0.2 mg。

2)代谢能为计算值,参考《肉羊营养需要量》(NY/T 816—2021)计算,其余为实测值。ME was a calculated value according to Nutrient Requirements of Meat-Type Sheep and Goat (NY/T 816—2021), while the others were measured values.

1.3 样品采集和指标测定

1.3.1 饲粮营养成分含量

饲粮粗蛋白质、粗脂肪、中性洗涤纤维、酸性洗涤纤维、钙和磷含量分别参照GB/T 6432—2018、GB/T 6433—2025、GB/T 20806—2022、NY/T 1459—2022、GB/T 6436—2018和GB/T 6437—2018中方法测定。

1.3.2 生长性能

分别于正试期第1天和第60天晨饲前,对所有试验羊进行空腹称重,用以计算平均日增重(average daily gain,ADG);试验期间准确记录每只山羊的日采食量,据此计算平均日采食量(average daily feed intake,ADFI);依据ADG和ADFI的结果,计算料重比(feed-to-gain ratio,F/G)。计算公式如下:
ADG(kg/d)=(终末体重-初始体重)/试验天数;
ADFI(kg/d)=(投喂量-剩料量)/试验天数;
F/G=ADFI/ADG。

1.3.3 血液收集和血清生化指标测定

于正试期结束当日晨饲前,采集每只山羊颈静脉血5 mL,4 ℃离心(1 500×g,15 min)后分离血清,分装于1.5 mL离心管中,于-20 ℃保存备用。采用全自动生化分析仪(cobas c311,Roche,瑞士)测定血清生化指标,包括血清葡萄糖(glucose,GLU)、TG、总胆固醇(total cholesterol,TC)、高密度脂蛋白胆固醇(high-density lipoprotein cholesterol,HDL-C)、低密度脂蛋白胆固醇(low-density lipoprotein cholesterol,LDL-C)和尿素氮(urea nitrogen,UN)含量。

1.3.4 皮下脂肪苏木精-伊红(HE)染色和油红O染色

从高能组和低能组中各取6份屠宰后采集的皮下脂肪样品,置于4%多聚甲醛溶液中固定,用于制备组织切片,随后送交武汉赛维尔生物科技有限公司进行皮下脂肪组织形态学分析。

1.3.5 皮下脂肪脂肪酸谱分析

脂质提取:采用氯仿-甲醇-水(8∶4∶3,体积比)混合体系处理冻干皮下脂肪样品,经氢氧化钾-甲醇溶液(浓度0.5 mol/L)甲酯化反应后制备成脂肪酸甲酯;随后加入1 mL正己烷和2 mL饱和氯化钠溶液,室温静置后取正己烷层转移至样品瓶。脂肪酸谱采用配备毛细管色谱柱(100 m×0.25 mm,0.20 μm)的气相色谱仪(GC-2010 Plus,岛津,日本)进行分析。升温程序设置为:初始柱温100 ℃保持1 min,以10 ℃/min升至180 ℃保持6 min,再以1 ℃/min升至200 ℃保持20 min,最后以4 ℃/min升至230 ℃保持20 min。载气(氦气)流速为1 mL/min,进样量为1 μL,分流比为100∶1。采用37种脂肪酸甲酯混合标准品进行定性鉴定,各脂肪酸峰面积经归一化法处理,结果以占总脂肪酸的百分含量(%)表示。所有样品均进行3次重复测定,最终数据取平均值。

1.3.6 皮下脂肪脂质组学分析

采用液相色谱-质谱联用(liquid chromatography-mass spectrometry,LC-MS)技术对高能组和低能组(n=6)屠宰后采集的皮下脂肪样品进行脂质组学分析。
脂质提取步骤如下:准确称取100 mg样品,加入750 μL氯仿-甲醇(2∶1,体积比)混合溶液;冰浴条件下加入190 μL萃取液,涡旋混匀后冰上静置10 min;4 ℃离心(12 676×g,5 min)后,取下层有机相300 μL;加入500 μL氯仿-甲醇混合溶液复提,再次离心后合并下层有机相400 μL;合并液经真空浓缩干燥,残留物以200 μL异丙醇复溶,过0.22 μm滤膜,得到LC-MS进样溶液。
色谱分离采用Thermo Vanquish系统,该系统配置ACQUITY UPLC® BEH C18色谱柱(100 mm×2.1 mm,1.7 μm),柱温为50 ℃,自动进样器温度为8 ℃;流动相为含0.1%甲酸和10 mmol/L甲酸铵的A相(乙腈∶水=60∶40,体积比)以及B相(异丙醇∶乙腈=90∶10,体积比),流速为0.25 mL/min,进样体积为2 μL。梯度洗脱程序如下:0~5.0 min,70%→57% A相;5.0~5.1 min,57%→50% A相;5.1~14.0 min,50%→30% A相;14.0~14.1 min,30% A相;14.1~21.0 min,30%→1% A相;21.0~24.0 min,1% A相;24.0~24.1 min,1%→70% A相;24.1~28.0 min,70% A相。
质谱采集采用电喷雾离子源、正负离子扫描模式,喷雾电压分别为+3.5和-2.5 kV;鞘气流量为30 arb,辅助气流量为10 arb;毛细管温度为325 ℃。全扫描分辨率为35 000,质量范围为150~2 000 m/z;采用数据依赖性采集(data-dependent acquisition,DDA)模式触发二级质谱扫描,高能碰撞解离(high energy collisional dissociation,HCD)碰撞能量为30 eV,并启用动态排除功能。脂质组学检测和数据分析由苏州帕诺米克生物医药科技有限公司完成。
脂质组学数据分析通过XCMS、MZmine2等软件完成,涵盖峰提取、噪声滤除、基线校正及峰对齐等步骤。采用主成分分析(principal component analysis,PCA)评估样本间整体代谢差异,并利用正交偏最小二乘判别分析(orthogonal partial least squares discriminant analysis,OPLS-DA)识别差异脂质。差异脂质的筛选基于变量投影重要性(variable importance in projection,VIP)>1和P<0.05进行,进一步以VIP>1、P<0.01且差异倍数(fold change,FC)≥2.0或≤0.5为标准确定关键差异脂质。

1.4 数据统计分析

生长性能、血清生化指标和皮下脂肪脂肪酸谱数据采用Excel 2019进行初步整理,然后采用SPSS 26.0软件的Student’s t检验进行分析,结果数据以平均值和均值标准误(SEM)表示,差异显著水平为P<0.05;数据可视化采用GraphPad Prism 10.0软件完成。

2 结果与分析

2.1 高低能量水平饲粮对山羊生长性能的影响

表2可知,高能组山羊终末体重(P=0.042)、ADG(P=0.001)和ADFI(P=0.009)均显著高于低能组,F/G显著低于低能组(P=0.006)。
表2 高低能量水平饲粮对山羊生长性能的影响

Table 2 Effects of high- and low-energy level diets on growth performance of goats

项目
Items
低能组
Low-energy group
高能组
High-energy group
均值标准误
SEM
P
P-value
初始体重IBW/kg 19.16 19.57 1.660 0.807
终末体重FBW/kg 22.68 26.44 1.683 0.042
平均日增重ADG/(kg/d) 0.06 0.11 0.009 0.001
平均日采食量ADFI/(kg/d) 0.71 0.90 0.062 0.009
料重比F/G 12.41 8.33 1.249 0.006

2.2 高低能量水平饲粮对山羊血清生化指标的影响

表3可知,高能组山羊血清TC(P=0.031)、HDL-C(P=0.001)和UN(P=0.033)含量显著高于低能组;2组间血清GLU、TG和LDL-C含量无显著差异(P>0.05)。
表3 高低能量水平饲粮对山羊血清生化指标的影响

Table 3 Effects of high- and low-energy level diets on serum biochemical indices of goats

项目
Items
低能组
Low-energy group
高能组
High-energy group
均值标准误
SEM
P
P-value
葡萄糖GLU 3.07 3.41 0.016 0.077
甘油三酯TG 0.35 0.39 0.020 0.091
总胆固醇TC 1.47 1.74 0.097 0.031
高密度脂蛋白胆固醇HDL-C 0.59 0.83 0.038 0.001
低密度脂蛋白胆固醇LDL-C 0.46 0.50 0.051 0.442
尿素氮UN 2.98 3.67 0.252 0.033

2.3 高低能量水平饲粮对山羊皮下脂肪形态的影响

图1-A所示,HE染色结果表明,低能组山羊皮下脂肪细胞体积较小,排列致密;如图1-B所示,高能组脂肪细胞体积大,形态饱满;如图1-C所示,高能组皮下脂肪细胞数量显著低于低能组(P<0.05)。如图1-D所示,油红O染色结果表明,低能组皮下脂肪细胞体积小而规则,胞浆内脂滴稀少;如图1-E所示,高能组脂肪细胞体积大,胞浆内脂滴数量明显增多;如图1-F所示,高能组皮下脂肪细胞中脂质染色阳性面积率显著高于低能组(P<0.05)。
图1 高低能量水平饲粮对山羊皮下脂肪形态的影响

A:低能组皮下脂肪HE染色 HE staining for subcutaneous fat in low-energy group;B:高能组皮下脂肪HE染色 HE staining of subcutaneous fat in high-energy group;C:皮下脂肪细胞数 number of subcutaneous fat cells;D:低能组皮下脂肪油红O染色 oil red O staining of subcutaneous fat in low-energy group;E:高能组皮下脂肪油红O染色 oil red O staining of subcutaneous fat in high-energy group;F:染色的阳性面积率 positive area rate of staining。

Fig.1 Effects of high- and low-energy level diets on subcutaneous fat morphology of goats

*表示P<0.05,**表示P<0.01。* indicated P<0.05, and ** indicated P<0.01.

2.4 高低能量水平饲粮对山羊皮下脂肪脂肪酸谱的影响

表4可知,在山羊皮下脂肪中,高能组棕榈酸(C16∶0)(P=0.036)和饱和脂肪酸(saturated fatty acid,SFA)(P=0.042)含量显著高于低能组,肉豆蔻油酸(C14∶1)(P=0.040)、油酸(C18∶1n-9c)(P=0.041)、花生四烯酸(C20∶4n-6)(P=0.039)和单不饱和脂肪酸(monounsaturated fatty acid,MUFA)(P=0.013)含量显著低于低能组。
表4 高低能量水平饲粮对山羊皮下脂肪脂肪酸谱的影响

Table 4 Effects of high- and low-energy level diets on fatty acid profile in subcutaneous fat of goats

项目
Items
低能组
Low-energy group
高能组
High-energy group
均值标准误
SEM
P
P-value
癸酸C10∶0/% 0.31 0.36 0.057 0.414
月桂酸C12∶0/% 1.11 1.85 0.488 0.202
肉豆蔻酸C14∶0/% 4.72 5.03 0.298 0.355
棕榈酸C16∶0/% 22.35 22.96 0.196 0.036
硬脂酸C18∶0/% 22.44 21.92 0.729 0.511
肉豆蔻油酸C14∶1/% 0.27 0.25 0.008 0.040
棕榈油酸C16∶1/% 2.78 2.72 0.280 0.840
油酸C18∶1n-9c/% 28.90 27.96 0.315 0.041
反式油酸C18∶1n-9t/% 4.20 4.02 0.298 0.580
反式亚油酸C18∶2n-6t/% 0.45 0.49 0.018 0.124
亚油酸C18∶2n-6c/% 3.63 4.30 0.361 0.139
γ-亚麻酸C18∶3n-6/% 0.27 0.26 0.032 0.756
二高-γ-亚麻酸C20∶3n-6/% 0.24 0.28 0.028 0.260
花生四烯酸C20∶4n-6/% 7.19 6.88 0.102 0.039
α-亚麻酸C18∶3n-3/% 0.48 0.44 0.032 0.361
二十碳三烯酸C20∶3n-3/% 0.29 0.27 0.039 0.626
二十碳五烯酸C20∶5n-3/% 0.26 0.24 0.018 0.439
二十二碳六烯酸C22∶6n-3/% 0.25 0.22 0.026 0.419
饱和脂肪酸SFA/% 50.92 52.11 0.403 0.042
单不饱和脂肪酸MUFA/% 36.16 34.96 0.284 0.013
多不饱和脂肪酸PUFA/% 13.06 13.39 0.409 0.468
n-3多不饱和脂肪酸n-3 PUFA/% 1.27 1.18 0.063 0.212
n-6多不饱和脂肪酸n-6 PUFA/% 11.78 12.20 0.382 0.334
n-6多不饱和脂肪酸/n-3多不饱和脂肪酸
n-6 PUFA/n-3 PUFA
9.27 10.33 0.449 0.078

2.5 高低能量水平饲粮对山羊皮下脂肪脂质组的影响

2.5.1 皮下脂肪脂质种类和含量
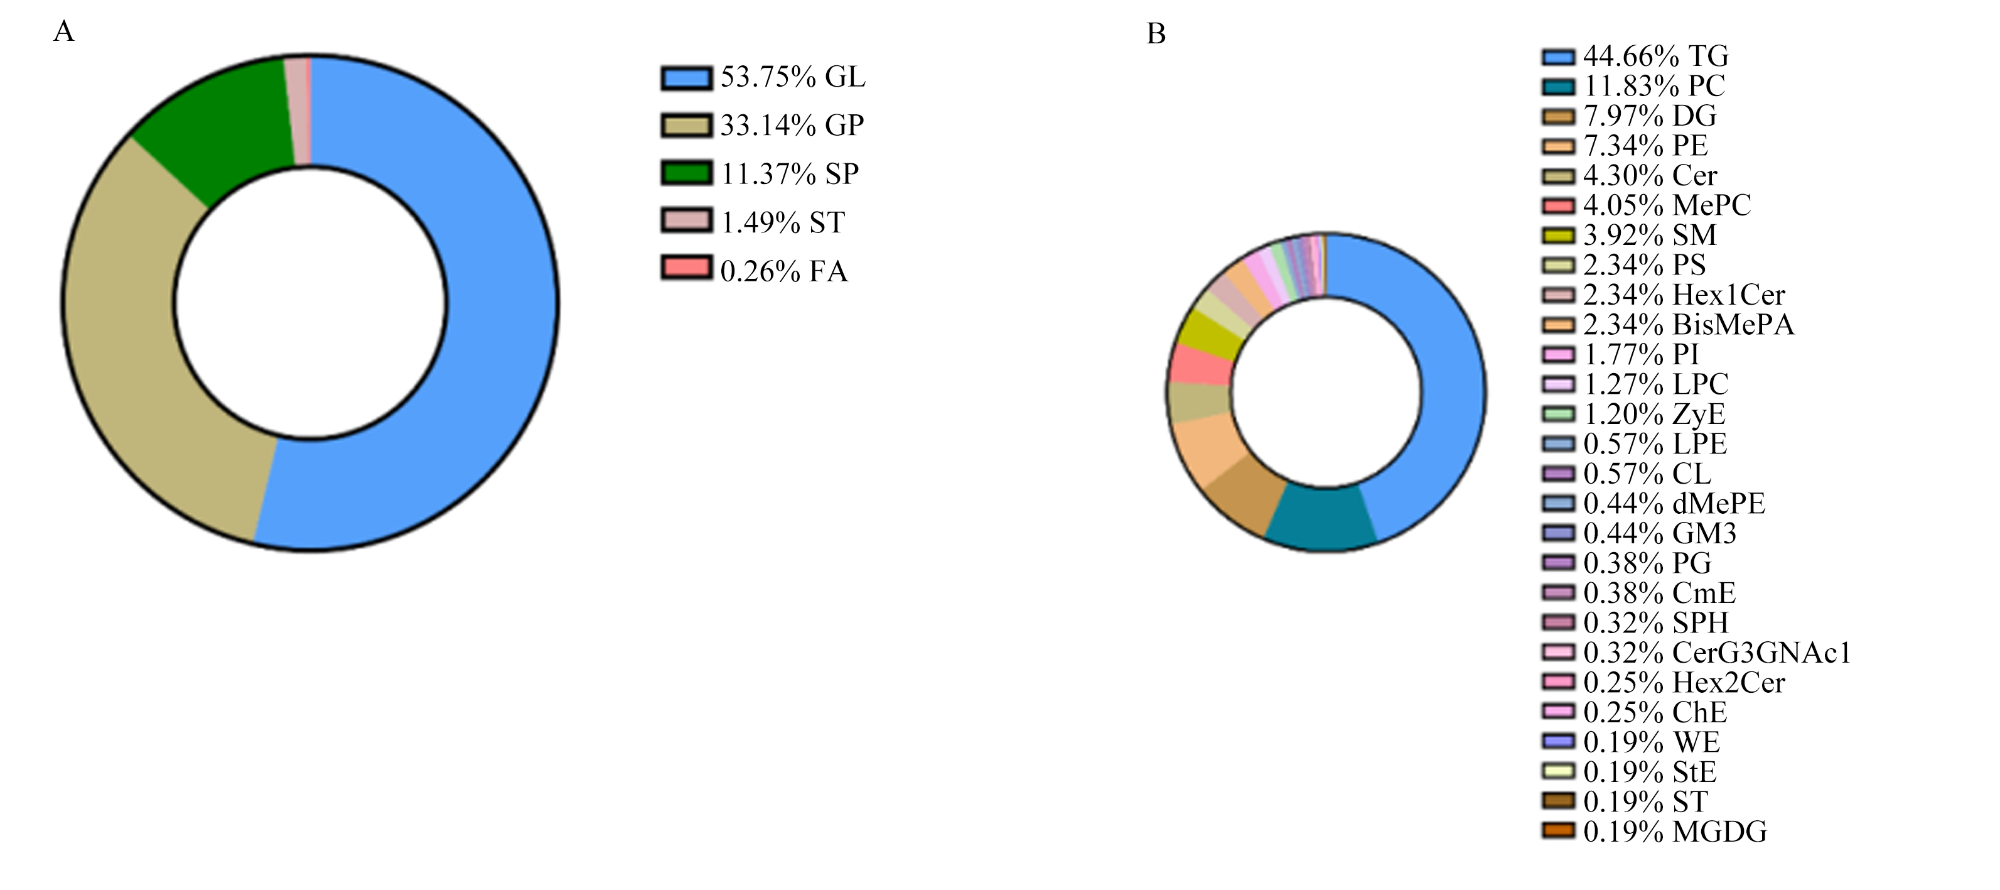
采用LC-MS技术共鉴定出1 600种脂质分子,包括708种TG、187种磷脂酰胆碱(phosphatidylcholine,PC)、126种DG、68种神经酰胺(ceramide,Cer)、16种磷脂酰乙醇胺(phosphatidylethanolamine,PE)以及其他脂质。将高能组和低能组皮下脂肪中鉴定出的脂质通过Lipid Maps数据库(https://lipidmaps.org)进行注释,共得到5类脂质代谢物。如图2-A所示,甘油酯(glycerolipid,GL)占比最高(53.75%),其次为甘油磷脂(glycerophospholipid,GP)(33.14%),还有部分鞘脂(sphingolipid,SP)(11.37%)、固醇酯(sterol lipid,ST)(1.49%)和脂肪酸(0.26%)。图2-B展示了27种脂质亚类的分布情况,其中TG(44.66%)、PC(11.83%)、DG(7.97%)和PE(7.34%)占主要比例。
图2 山羊皮下脂肪脂质种类和含量

A:皮下脂肪脂质总类含量 total class contents of subcutaneous fat lipids;B:皮下脂肪脂质亚类含量 subclass contents of subcutaneous fat lipids。

GL:甘油酯 glycerolipid;GP:甘油磷脂 glycerophospholipid;SP:鞘脂 sphingolipid;ST:固醇酯 sterol lipid;FA:脂肪酸 fatty acid;TG:甘油三酯 triglyceride;PC:磷脂酰胆碱 phosphatidylcholine;DG:甘油二酯 diglyceride;PE:磷脂酰乙醇胺 phosphatidylethanolamine;Cer:神经酰胺 ceramide;MePC:甲基磷脂酰胆碱 methylphosphatidylcholine;SM:鞘磷脂 sphingomyelin;PS:磷脂酰丝氨酸 phosphatidylserine;Hex1Cer:己糖神经酰胺 hexosylceramide;BisMePA:双甲基磷脂酸 bis-methyl phosphatidic acid;PI:磷脂酰肌醇 phosphatidylinositol;LPC:溶血磷脂酰胆碱 lyso-phosphatidylcholine;ZyE:酵母甾醇酯 zymosteryl ester;LPE:溶血磷脂酰乙醇胺 lyso-phosphatidylethanolamine;CL:心磷脂 cardiolipin;dMePE:二甲基磷脂酰乙醇胺 dimethylphosphatidylethanolamine;GM3:单唾液酸神经节苷脂GM3 monosialoganglioside GM3;PG:磷脂酰甘油 phosphatidylglycerol;CmE:胆固醇甲酯 cholesterol methyl ester;SPH:鞘氨醇 sphingosine;CerG3GNAc1:三己糖基N-乙酰己糖神经酰胺 trihexosyl N-acetylhexosyl ceramide;Hex2Cer:二己糖神经酰胺 dihexosylceramide;ChE:胆固醇酯 cholesteryl ester;WE:蜡酯 wax ester;StE:豆甾醇酯 stigmasteryl ester;MGDG:单半乳糖二酰甘油酯 monogalactosyldiacylglycerol。

Fig.2 Types and contents of lipids in subcutaneous fat of goats

2.5.2 皮下脂肪差异脂质表征

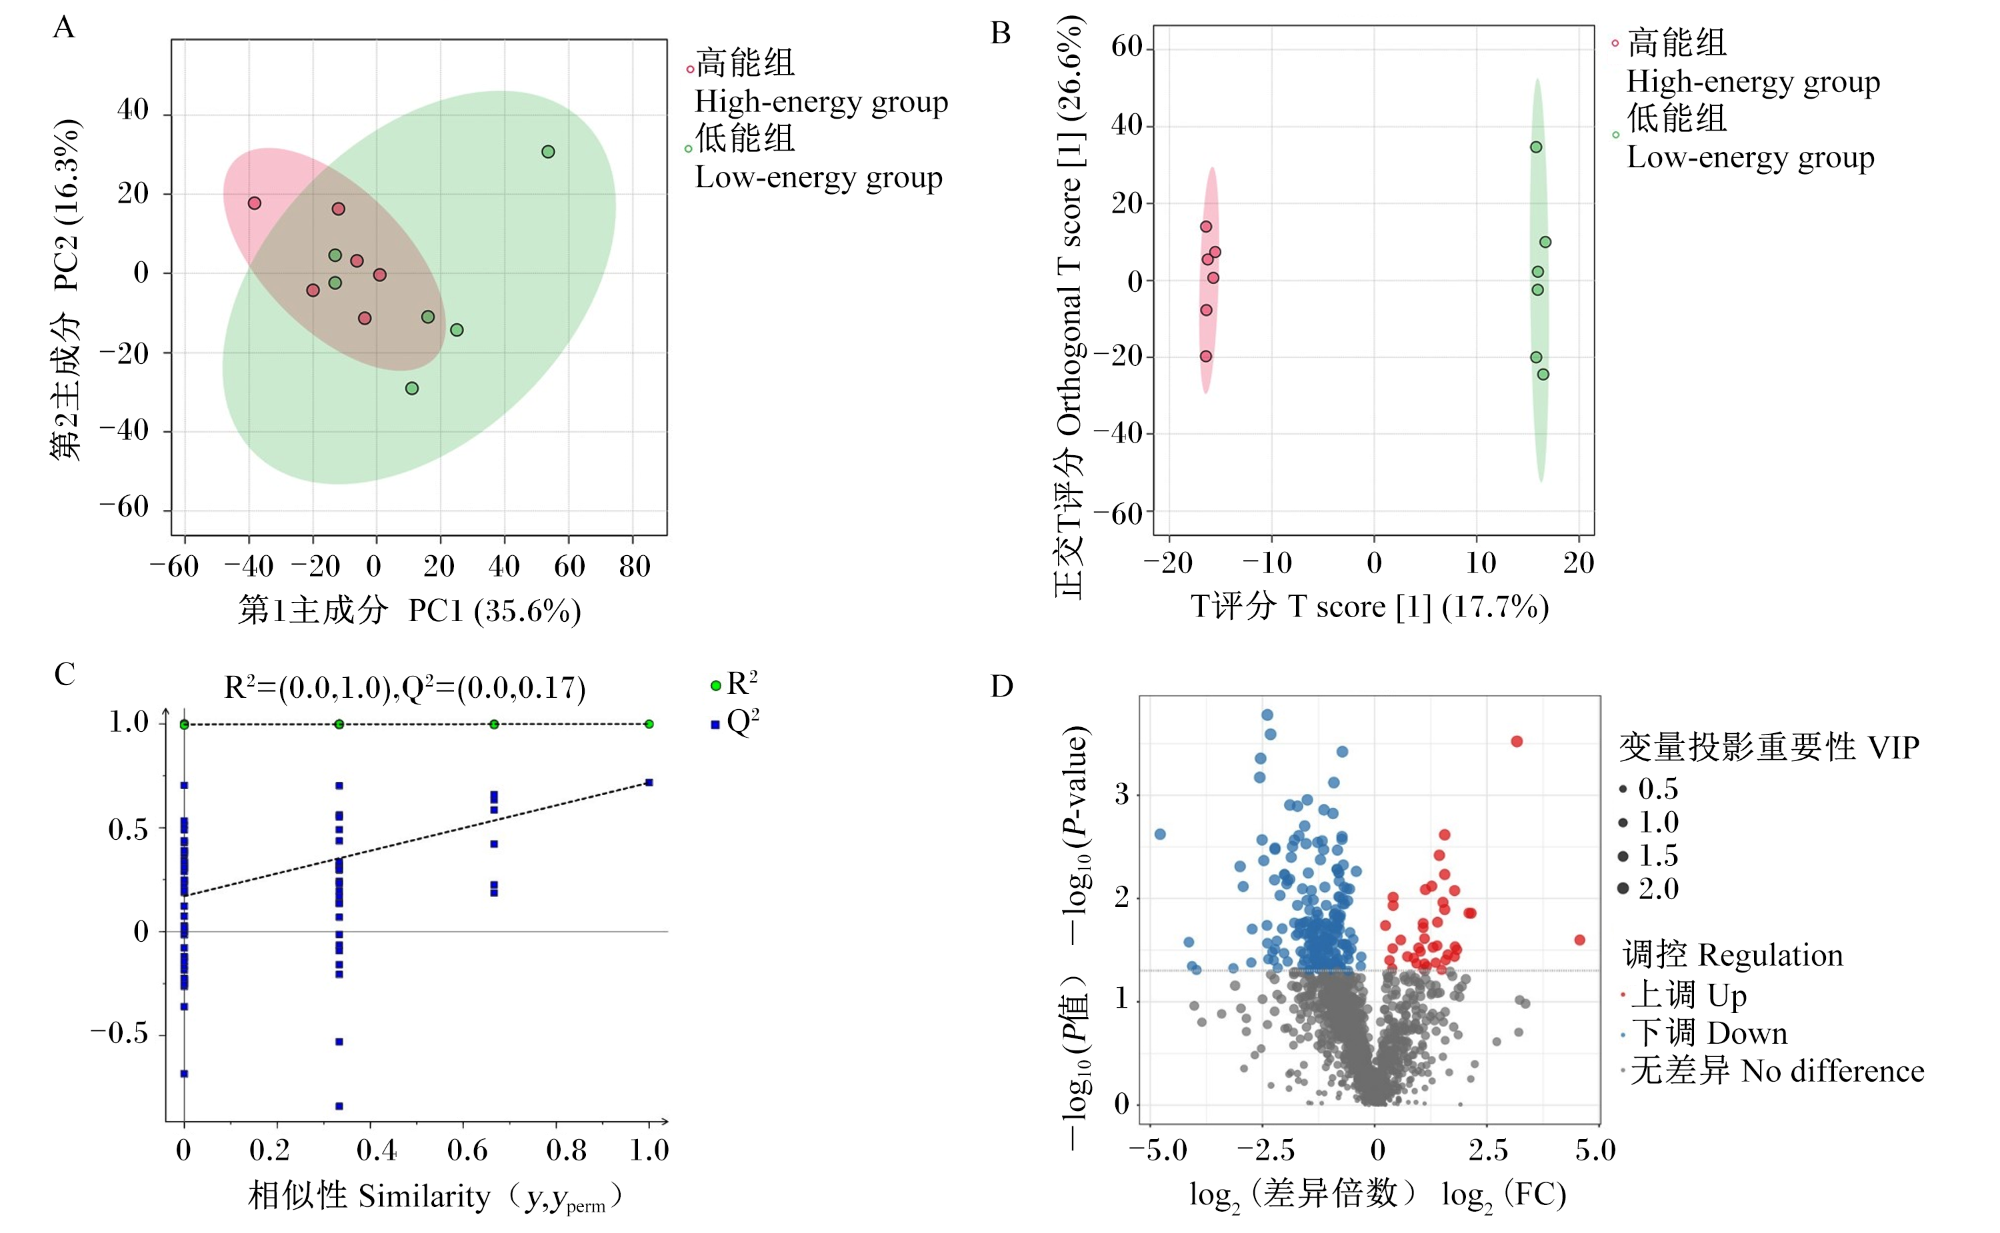
图3-A所示,PCA结果表明,第1主成分和第2主成分对样本变异的解释度分别为35.6%和16.3%,2组间样本未形成明显的聚类。如图3-B所示,OPLS-DA结果表明,2组间样本明显分离,存在明显差异。为进一步避免模型过拟合,构建了OPLS-DA置换检验模型(图3-C),其参数R2X=0.652,R2Y=0.999,Q2=0.717;当Q2>0.5时,表明OPLS-DA模型具有良好的解释能力。基于该模型,以VIP>1且P<0.05为标准,筛选差异脂质;如图3-D所示,与低能组相比,高能组皮下脂肪脂质组中共鉴定出259个差异表达脂质,其中40个为上调脂质,219个为下调脂质。
图3 山羊皮下脂肪差异脂质表征

A:主成分分析 PCA;B:正交偏最小二乘判别分析 OPLS-DA;C:OPLS-DA的置换检验 permutation test of OPLS-DA;D:差异脂质分子火山图 differential lipid molecule volcano plot。

Fig.3 Differential lipid characterization in subcutaneous fat of goats

根据VIP>1、P<0.01且FC≥2.0或≤0.5的标准,进一步筛选出42种关键差异脂质分子。由表5图4可知,与低能组相比,高能组有7种脂质上调,35种脂质下调;其中,上调脂质包括6种TG和1种磷脂酰丝氨酸(phosphatidylserine,PS),下调脂质包括15种TG、5种PC、6种PE、2种鞘磷脂(sphingomyelin,SM)、4种甲基磷脂酰胆碱(methylphosphatidylcholine,MePC)和3种双甲基磷脂酸(bis-methyl phosphatidic acid,BisMePA)。
表5 关键差异脂质

Table 5 Key differential lipids

脂质
Lipids
差异倍数
Fold change
VIP值
VIP value
P
P-value
类型
Type
TG (20∶1/10∶0/14∶0) 8.98 2.06 3.01×10⁻⁴ Up
TG (16∶0/20∶1/20∶1) 3.43 1.71 8.38×10⁻³ Up
TG (20∶3e/18∶1/18∶1) 2.95 1.75 5.85×10⁻³ Up
TG (18∶4/18∶0/18∶0) 2.94 1.86 2.42×10⁻³ Up
TG (14∶0/14∶0/14∶0) 2.70 1.82 3.81×10⁻³ Up
TG (18∶0/16∶1/18∶1) 2.42 1.73 7.59×10⁻³ Up
PS (40∶7) 2.18 1.71 8.19×10⁻³ Up
SM (d41∶0) 0.46 1.72 7.74×10⁻³ Down
TG (10∶0/14∶0/14∶0) 0.46 1.91 1.39×10⁻³ Down
TG (18∶1/18∶2/23∶1) 0.45 1.84 3.36×10⁻³ Down
TG (10∶0/18∶3/18∶3) 0.44 1.84 2.77×10⁻³ Down
TG (15∶0/6∶0/16∶0) 0.43 1.78 4.21×10⁻³ Down
MePC (36∶6e) 0.42 1.85 2.86×10⁻³ Down
BisMePA (18∶3e/22∶4) 0.38 1.71 8.37×10⁻³ Down
TG (36∶1) 0.36 1.75 5.65×10⁻³ Down
TG (14∶1e/18∶1/18∶1) 0.35 1.84 2.94×10⁻³ Down
TG (16∶0/10∶0/12∶0) 0.35 1.93 1.11×10⁻³ Down
PE (16∶0/20∶5) 0.34 1.88 1.98×10⁻³ Down
TG (27∶1/6∶0/6∶0) 0.33 1.70 8.05×10⁻³ Down
PE (18∶1e/22∶6) 0.31 1.88 2.46×10⁻³ Down
TG (14∶0/14∶2/20∶5) 0.30 1.91 1.28×10⁻³ Down
TG (12∶0e/6∶0/22∶5) 0.29 1.86 2.71×10⁻³ Down
PC (18∶1/22∶5) 0.28 1.82 3.99×10⁻³ Down
TG (18∶3e/14∶0/18∶2) 0.28 1.84 3.14×10⁻³ Down
MePC (33∶1) 0.27 1.74 6.50×10⁻³ Down
TG (30∶1/18∶2/18∶2) 0.27 1.93 1.24×10⁻³ Down
TG (18∶1/18∶2/24∶2) 0.26 1.74 7.21×10⁻³ Down
TG (12∶0/12∶0/12∶0) 0.26 1.73 6.67×10⁻³ Down
BisMePA (18∶0/22∶6) 0.25 1.76 5.86×10⁻³ Down
PC (15∶0/22∶5) 0.25 1.76 5.86×10⁻³ Down
TG (63∶5) 0.23 1.70 9.31×10⁻³ Down
MePC (34∶3) 0.22 1.84 3.34×10⁻³ Down
PC (35∶6) 0.21 1.75 6.60×10⁻³ Down
PC (37∶6) 0.21 1.84 3.25×10⁻³ Down
PE (40∶8e) 0.20 2.07 2.57×10⁻³ Down
SM (t39∶7) 0.19 2.09 1.67×10⁻³ Down
PE (18∶1p/22∶6) 0.18 1.81 4.29×10⁻³ Down
PE (18∶0/22∶6) 0.18 1.86 2.70×10⁻³ Down
MePC (37∶3) 0.17 2.00 6.72×10⁻⁴ Down
BisMePA (38∶8e) 0.17 2.03 4.41×10⁻⁴ Down
PC (42∶10) 0.12 1.91 4.89×10⁻³ Down
PE (38∶1e) 0.04 1.88 2.39×10⁻³ Down

TG:甘油三酯 triglyceride;PS:磷脂酰丝氨酸 phosphatidylserine;SM:鞘磷脂 sphingomyelin;MePC:甲基磷脂酰胆碱 methylphosphatidylcholine;BisMePA:双甲基磷脂酸 bis-methyl phosphatidic acid;PE:磷脂酰乙醇胺 phosphatidylethanolamine;PC:磷脂酰胆碱 phosphatidylcholine;Up:上调;Down:下调。

图4 筛选的脂质分子聚类热图

TG:甘油三酯 triglyceride;PS:磷脂酰丝氨酸 phosphatidylserine;SM:鞘磷脂 sphingomyelin;MePC:甲基磷脂酰胆碱 methylphosphatidylcholine;BisMePA:双甲基磷脂酸 bis-methyl phosphatidic acid;PE:磷脂酰乙醇胺 phosphatidylethanolamine;PC:磷脂酰胆碱 phosphatidylcholine。

H-1~H-6为高能组样本,L-1~L-6为低能组样本。H-1 to H-6 were samples in high-energy group, and L-1 to L-6 were samples in low-energy group.

Fig.4 Clustering heatmap of screened lipid molecules

3 讨论

3.1 高低能量水平饲粮对山羊生长性能的影响

饲粮能量水平对动物生长发育具有关键调控作用。本研究结果表明,高能组山羊ADG和ADFI显著高于低能组,F/G显著低于低能组。雪雅妮[12]报道,提高饲粮能量水平可显著提高育肥藏羊ADG和采食量。Wang等[13]在绵羊中的研究同样证实,提高饲粮能量水平能显著提高ADG,并降低F/G。上述研究结果与本试验结果相一致。此外,Chen等[14]在安格斯牛的试验中也观察到高能饲粮对ADG的促进作用。由此可知,在满足基础营养需要的前提下,适当提高饲粮能量水平可有效促进山羊生长,提升饲料利用效率。

3.2 高低能量水平饲粮对山羊血清生化指标的影响

血清生化指标可以直接反映机体的营养水平、新陈代谢和健康状况。血清GLU含量是反映机体能量代谢平衡的重要指标。徐倩等[15]研究发现,高能组滩羊血清GLU含量显著高于对照组(仅放牧)和低能组。张振宇等[16]报道,牦牛血清GLU含量随饲粮能量和蛋白质水平的提高而显著升高,表明在一定范围内提高饲粮能量和蛋白质水平能提升血清GLU含量。这与本试验结果一致,本试验发现,山羊血清GLU含量随着饲粮能量水平的升高而呈升高趋势,但差异不显著。由此说明,提高饲粮能量水平可促进机体糖代谢增强,但未影响其正常运转。血清TC和TG含量能够有效反映脂类的吸收和代谢情况[17]。Jiang等[18]研究发现,高能组和中能组牦牛血清TG含量显著高于低能组。杨诚[19]观察到高能组和低能组间牦牛血清TG含量无显著差异,但高能组血清TC含量显著高于低能组。这与本试验结果一致,山羊血清TC含量随着饲粮能量水平的升高而显著升高,血清TG含量有升高趋势。这说明高能量水平的饲粮能促进机体的脂代谢。HDL-C和LDL-C主要参与血液中TC的运输以及脂质代谢。邵三勤等[20]研究发现,高能组郏县红牛血清HDL-C含量显著高于低能组。随着饲粮能量水平的升高,湖羊母羔血清LDL-C含量显著提高[21]。本研究发现,山羊血清HDL-C含量随着饲粮能量水平的提高而显著升高,血清LDL-C含量无显著差异。这可能是因为饲粮中更高水平的能量使TC合成以及分解到血液里的速度更快,从而使机体合成更多的HDL-C,将脂类转运至肝脏进行分解代谢。同时,由于肝脏代谢能力有限,因而会产生更多的LDL-C将TC由肝脏向外周转运,最终导致血清HDL-C和LDL-C含量都升高。血清UN含量反映机体蛋白质的利用效率,研究表明血清UN含量与氮沉积和氨基酸利用率呈负相关[22]。本试验结果显示,高能组山羊血清UN含量显著高于低能组。戴东文等[23]在育肥牦牛的研究中发现,血清UN含量随饲粮精粗比的升高而提高,与本研究结果一致。反刍动物瘤胃存在能-氮协同效应,高能量水平饲粮可能会破坏能-氮代谢平衡,导致瘤胃微生物产生的氮未能被及时利用,多余氮经吸收进入血液,在肝脏合成尿素,引起血清UN含量升高。

3.3 高低能量水平饲粮对山羊皮下脂肪形态和脂肪酸谱的影响

脂肪细胞在能量平衡中发挥核心调控作用,脂肪细胞的数量和大小随着动物体重和年龄的增加而变化,进而影响脂肪沉积进程[24]。研究报道,在动物生长发育过程中,脂肪沉积形式主要表现为由细胞数量增加向细胞体积增大转变,该过程受到动物品种、酶活性、激素水平及饲粮能量水平等因素的综合调控[25]。本研究发现,山羊皮下脂肪细胞体积随饲粮能量水平的升高而增大,而脂肪细胞数量则相应减少。高良霜等[26]研究发现,高能组阿勒泰羊尾部脂肪细胞形态大且饱满,而低能组尾部脂肪细胞数量多、直径小。任建刚[27]对饲喂不同能量水平饲粮安格斯牛的研究发现,低能组肾周脂肪细胞体积较小、数量较多。这与本试验结果一致,表明提高饲粮能量水平主要通过促进脂肪细胞体积增大来增强机体脂肪沉积。
SFA是动物体内主要的脂肪酸,但人体过量摄入会增加患心血管疾病的风险。本试验结果显示,与低能组相比,高能组山羊皮下脂肪中棕榈酸和SFA含量显著提高。王雨琼等[28]研究发现,随着饲粮精料比例的提高,羔羊肉中棕榈酸和SFA含量也随之提高,这与本研究结果一致。由此可见,在能量供给充足的山羊体内,脂肪组织启动内源性脂肪酸合成途径,从而产生大量SFA。不饱和脂肪酸(unsaturated fatty acid,UFA)与肉品质、风味及营养价值密切相关,其中较高含量的MUFA和多不饱和脂肪酸(polyunsaturated fatty acid,PUFA)不仅能改善肉的感官特性(如风味、胆固醇含量和营养特性),还对人体健康有益。本试验结果表明,低能组山羊皮下脂肪组织中MUFA含量显著高于高能组。Gao等[29]观察到随着饲粮能量水平的提高,绵羊皮下脂肪中MUFA含量持续下降。安雪姣等[30]同样发现,长期饲喂高精料饲粮会降低羔羊肉肌间脂肪中MUFA、亚油酸、花生四烯酸和α-亚麻酸含量。这可能是由于高能饲粮改变了瘤胃微生物群落,促进了瘤胃微生物的氢化作用,从而降低了UFA含量[31]。上官明军等[32]研究还发现,特藏寒羊肌肉中SFA含量随饲粮精粗比的提高而提高,而UFA含量则相反。周力等[33]研究发现,与饲喂低精粗比饲粮相比,饲喂高精粗比饲粮的藏羊肌肉SFA含量显著升高。以上研究结果均与本试验结果一致。这可能与动物摄入饲粮中的粗纤维含量有关,低纤维、高能量饲粮能够促进拟杆菌属分解碳水化合物,为氢化菌提供充足的底物,从而促进UFA转化为SFA[34]。本研究还发现,低能组皮下脂肪花生四烯酸含量显著高于高能组,而棕榈酸含量显著低于高能组。花生四烯酸具有促进胎儿发育、增强免疫功能、保护皮肤、降低胆固醇及抑制血小板聚集等独特的生物活性[35];而棕榈酸已被证实会提高血液胆固醇水平,因此其在动物组织中含量较低更有利于人体健康[36]。由此可见,低能组羊肉的品质优于高能组。n-6 PUFA/n-3 PUFA值是评价肉品质的重要指标,建议牛肉中该比值不超过4[37]。本研究中,2组n-6 PUFA/n-3 PUFA值均高于4,可能与动物品种有关。尽管超出推荐范围,但低能组该比值相对较低,说明饲喂低能量水平饲粮可改善羊肉的食用品质。因此,从消费者营养和健康角度考虑,低能饲喂有助于提升羊肉的营养价值。

3.4 高低能量水平饲粮对山羊皮下脂肪脂质组的影响

脂质种类和含量是评价肉品质的重要指标。本研究在山羊皮下脂肪中共鉴定出5个脂质类别、27个脂质亚类及1 600种脂质分子。前人利用非靶向脂质组学技术对宰后蒙古羊肉进行分析,共鉴定出6个脂质类别、36个脂质亚类及812种脂质分子[38]。结果上的差异可能与动物品种来源及脂质数据库不同有关。已有研究指出,GL、GP和SP是羊肉中的主要脂质类别[39],这与本研究结果一致。进一步筛选结果显示,与低能组相比,高能组共有7种脂质上调,35种脂质下调;其中,TG类共有6种上调,15种下调。TG是脂肪酸在体内的主要储存形式,并通过脂蛋白参与运输,可为机体发育提供和储备能量,同时具有固定和保护内脏的作用,在动物脂质代谢中发挥关键功能[40]。TG是皮下脂肪中含量最丰富的脂质,占总脂质含量的44.66%,TG的差异主要与脂滴的形成有关。本研究聚焦于TG分子侧链位点上的脂肪酸,这些脂肪酸易被脂肪酶水解为游离脂肪酸,或经氧化反应释放多种挥发性物质[41]。本研究结果显示,TG中的UFA主要分布在sn-2和sn-3位点。在下调的TG脂质中,如TG(18∶1/18∶2/23∶1)、TG(10∶0/18∶3/18∶3)、TG(14∶1e/18∶1/18∶1)、TG(30∶1/18∶2/18∶2)和TG(14∶0/14∶2/20∶5)等,sn-3位点常为PUFA的富集位点。研究表明,摄入富含UFA的肉类对人体健康有益[42]。同时,与低能组相比,高能组中有5种PC和6种PE显著下调。Hou等[43]在研究莱芜猪和约克夏猪肌肉脂质时发现,随着肌内脂肪含量的升高,PC和PE含量相应降低。PC和PE属于GP,而磷脂是肌内脂肪的主要组成成分,有助于改善肉类的风味、质地和适口性;PC是肌肉组织中储存脂肪酸的主要磷脂,有助于维持肉类的健康特性;PE的分解是游离脂肪酸增加的主要原因,而游离脂肪酸对肉类加工过程中风味的形成具有关键作用[44]。本研究发现,PC和PE的sn-2位点存在UFA,如PC(15∶0/22∶5)、PC(18∶1/22∶5)、PE(18∶1p/22∶6)和PE(18∶0/22∶6),这些脂肪酸在热氧化过程中可产生挥发性化合物,从而增加羊肉的风味。此外,磷脂分子对维持细胞膜的结构和生理功能至关重要,能够促进细胞信号传导和分化过程,在增强记忆和预防心血管疾病方面有重要作用[45]。本试验结果表明,高能量水平饲粮影响了脂质的组成,对山羊肉质风味以及功能产生了不利影响。

4 结论

综上所述,在本试验条件下,提高饲粮能量水平可以提高山羊生长性能,并提高血清TC和HDL-C含量;然而,随着饲粮能量水平的提高,山羊皮下脂肪中油酸、花生四烯酸和MUFA含量显著降低,多数TG分子及PC、PE等磷脂类分子亦显著下调,这可能对肉品质及人类膳食健康产生不利影响。
[1]
OWENS F N, DUBESKI P, HANSON C F. Factors that alter the growth and development of ruminants[J]. Journal of Animal Science, 1993, 71(11):3138-3150.

PMID

[2]
NUSRI-UN J, KABSUK J, BINSULONG B, et al. Effects of cattle breeds and dietary energy density on intake,growth,carcass,and meat quality under Thai feedlot management system[J]. Animals, 2024, 14(8):1186.

DOI

[3]
STEEN R W J. The effect of plane of nutrition and slaughter weight on growth and food efficiency in bulls,steers and heifers of three breed crosses[J]. Livestock Production Science, 1995, 42(1):1-11.

DOI

[4]
OLTJEN J W, BYWATER A C, BALDWIN R L, et al. Evaluation of a model of beef cattle growth and composition[J]. Journal of Animal Science, 1986, 62(1):98-108.

DOI

[5]
KANG D H, CHUNG K Y, PARK B H, et al. Effects of feeding high-energy diet on growth performance,blood parameters,and carcass traits in Hanwoo steers[J]. Animal Bioscience, 2022, 35(10):1545-1555.

DOI

[6]
JUNIOR F F, DE FREITAS PENA A, GRANDIS F A, et al. Subcutaneous fat thickness at slaughter in castrated and non-castrated Santa Inês and Dorper lambs and its influence on meat and carcass quality[J]. Livestock Science, 2021, 253:104694.

DOI

[7]
WEBB E C, O’NEILL H A. The animal fat paradox and meat quality[J]. Meat Science, 2008, 80(1):28-36.

DOI PMID

[8]
WOOD J D, ENSER M, FISHER A V, et al. Fat deposition,fatty acid composition and meat quality:a review[J]. Meat Science, 2008, 78(4):343-358.

DOI

[9]
ZHANG X H, WU Z L, GAN J C, et al. Effects of dietary protein levels on genes related to subcutaneous fat deposition and lipid metabolism in Tibetan sheep[J]. BMC Genomics, 2025, 26(1):669.

DOI PMID

[10]
LI J, YANG Y Y, TANG C H, et al. Changes in lipids and aroma compounds in intramuscular fat from Hu sheep[J]. Food Chemistry, 2022, 383:132611.

DOI

[11]
MAN K Y, CHAN C O, TANG H H, et al. Mass spectrometry-based untargeted metabolomics approach for differentiation of beef of different geographic origins[J]. Food Chemistry, 2021, 338:127847.

DOI

[12]
雪雅妮. 饲粮能量水平对高原型藏羊生长性能、血清生化指标及肉品质的影响[J]. 饲料工业, 2024, 45(5):64-69.

XUE Y N. Effects of dietary energy levels on growth performance,serum biochemical indicators,and meat quality of plateau Tibetan sheep[J]. Feed Industry, 2024, 45(5):64-69. (in Chinese)

[13]
WANG X L, ZHOU J, LU M L, et al. Effects of dietary energy levels on growth performance,nutrient digestibility,rumen barrier and microflora in sheep[J]. Animals, 2024, 14(17):2525.

DOI

[14]
CHEN K H, SHUI Y H R, DENG M, et al. Effects of different dietary energy levels on growth performance,meat quality and nutritional composition,rumen fermentation parameters,and rumen microbiota of fattening Angus steers[J]. Frontiers in Microbiology, 2024, 15:1378073.

DOI

[15]
徐倩, 郭帅, 张亮亮, 等. 补饲对放牧滩羊生长性能、血清生化及代谢组的影响[J]. 草业学报, 2025, 34(6):122-138.

DOI

XU Q, GUO S, ZHANG L L, et al. Effects of supplemental feeding on growth rate,and serum biochemical and metabolomic parameters of grazing Tan sheep[J]. Acta Prataculturae Sinica, 2025, 34(6):122-138. (in Chinese)

[16]
张振宇, 梁春年, 姚喜喜, 等. 日粮不同营养水平对牦牛生产性能、屠宰指标和血清生化指标的影响[J]. 畜牧兽医学报, 2021, 52(1):135-143.

DOI

ZHANG Z Y, LIANG C N, YAO X X, et al. Effects of different nutrition levels of diets on production performance,slaughter indexes and serum biochemical indexes of yak[J]. Acta Veterinaria et Zootechnica Sinica, 2021, 52(1):135-143. (in Chinese)

[17]
王勇, 侯磊, 薛海鹏, 等. 日粮营养水平对黑山羊肥育羔羊血液指标的影响[J]. 湖北畜牧兽医, 2021, 42(1):8-9.

WANG Y, HOU L, XUE H P, et al. Effect of dietary nutrition level on blood indexes of fattening lambs of black goats[J]. Hubei Journal of Animal and Veterinary Sciences, 2021, 42(1):8-9. (in Chinese)

[18]
JIANG Y H, ZHANG J L, WANG K W, et al. The effects of dietary energy level on the growth performance of yaks (Bos grunniens) were studied based on omics technique[J]. Frontiers in Microbiology, 2025, 16:1621581.

DOI

[19]
杨诚. 日粮能量水平对冷季舍饲育肥牦牛生产性能及消化代谢的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2024.

YANG C.Effects of dietary energy levels on the performance and digestive metabolism of yaks indoor fattened in cold season[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2024. (in Chinese)

[20]
邵三勤, 孙开冬, 陈秋鹏, 等. 不同能量水平玉米秸秆青贮饲料对郏县红牛表观消化率、血清生化指标、屠宰性能及肉品质的影响[J]. 饲料工业, 2024, 45(19):56-62.

SHAO S Q, SUN K D, CHEN Q P, et al. Effects of corn stalk silage with different energy levels on apparent digestibility,serum biochemical indexes,slaughter performance and meat quality of Jia county red bull[J]. Feed Industry, 2024, 45(19):56-62. (in Chinese)

[21]
WANG Y C, WANG Q Y, DAI C P, et al. Effects of dietary energy on growth performance,carcass characteristics,serum biochemical index,and meat quality of female Hu lambs[J]. Animal Nutrition, 2020, 6(4):499-506.

DOI

[22]
XIA C Q, AZIZ UR RAHMAN M, YANG H, et al. Effect of increased dietary crude protein levels on production performance,nitrogen utilisation,blood metabolites and ruminal fermentation of Holstein bulls[J]. Asian-Australasian Journal of Animal Sciences, 2018, 31(10):1643-1653.

DOI

[23]
戴东文, 王书祥, 周振明, 等. 不同精粗比饲粮对育肥前期牦牛生长性能、血清生化指标及瘤胃发酵参数的影响[J]. 动物营养学报, 2021, 33(3):1555-1564.

DOI

DAI D W, WANG S X, ZHOU Z M, et al. Effects of diets with different concentrate-roughage ratios on growth performance,serum biochemical indexes and rumen fermentation parameters of yak in early stage of fattening[J]. Chinese Journal of Animal Nutrition, 2021, 33(3):1555-1564. (in Chinese)

[24]
张建童. 不同能量饲喂策略对湖羊脂肪差异沉积和自噬的影响[D]. 硕士学位论文. 南昌: 江西农业大学, 2022.

ZHANG J T. Effects of different energy feeding strategies on fat differential deposition and autophagy in Hu sheep[D]. Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2022. (in Chinese)

[25]
王燕新, 廖圆圆, 阿依木古丽, 等. 绵羊脂肪代谢与调控机理研究进展[J]. 黑龙江畜牧兽医, 2020(17):33-36.

WANG Y X, LIAO Y Y, AYIMUGULI, et al. Recent progress on the mechanism of fat metabolism in sheep[J]. Heilongjiang Animal Science and Veterinary Medicine, 2020(17):33-36. (in Chinese)

[26]
高良霜, 吴建平, 宋淑珍, 等. 不同能量水平对阿勒泰羊血清脂质指标及脂肪沉积的影响[J]. 饲料工业, 2020, 41(9):14-23.

GAO L S, WU J P, SONG S Z, et al. Effect of different energy levels on serum lipid index and lipid deposition of Altay sheep[J]. Feed Industry, 2020, 41(9):14-23. (in Chinese)

[27]
任建刚. 能量水平对安格斯牛育肥性能、肾周脂肪沉积及相关基因表达的影响[D]. 硕士学位论文. 阿拉尔: 塔里木大学, 2023.

REN J G. Effects of energy level on growth-fattening performance,perirenal fat deposition and related gene expression in Angus cattle[D]. Master’s Thesis. Alaer: Tarim University, 2023. (in Chinese)

[28]
王雨琼, 勾长龙, 胡冰, 等. 日粮精粗比对乌珠穆沁羊生长性能、肉品质和肌肉脂肪酸组成的影响[J]. 饲料研究, 2021, 44(20):9-13.

WANG Y Q, GOU C L, HU B, et al. Effect of dietary concentrate to roughage ratios on growth performance,meat quality and muscle fatty acid composition of Ujimqin sheep[J]. Feed Research, 2021, 44(20):9-13. (in Chinese)

[29]
GAO Z H, RAZA S H A, MA B Y, et al. Effects of dietary forage-to-concentrate ratio on fat deposition,fatty acid composition,oxidative stability and mRNA expression of sirtuins genes of subcutaneous fat in sheep (Ovis aries)[J]. Journal of Applied Animal Research, 2023, 51(1):382-387.

DOI

[30]
安雪姣, 文禹粱, 宋淑珍, 等. 羔羊日粮精粗比对其肉及脂肪组织中脂肪酸组成的影响[J]. 草业科学, 2018, 35(3):654-662.

AN X J, WEN Y L, SONG S Z, et al. Effect of dietary concentrate to forage ratio on the fatty acid composition of the meat and fat tissues of lambs[J]. Pratacultural Science, 2018, 35(3):654-662. (in Chinese)

[31]
姜雅慧, 卜登攀, 杨红建, 等. 不饱和脂肪酸在瘤胃氢化的微生物学机制研究进展[J]. 华北农学报, 2015, 30(增刊):376-382.

JIANG Y H, BU D P, YANG H J, et al. The advance research of the microbial biohydrogenation mechanism of unsaturated fatty acid in rumen[J]. Acta Agriculturae Boreali-Sinica, 2015, 30(Suppl.):376-382.

[32]
上官明军, 吴佳琪, 郭宏宇, 等. 不同NFC/NDF全混合日粮对特藏寒羊育肥羔羊生长性能、屠宰性能及肉品质的影响[J]. 中国畜牧杂志, 2025, 61(9):388-393.

SHANGGUAN M J, WU J Q, GUO H Y, et al. Effects of different NFC/NDF total mixed diets on growth performance,slaughter performance and meat quality of fattening lambs of Tibetan Han sheep[J]. Chinese Journal of Animal Science, 2025, 61(9):388-393. (in Chinese)

[33]
周力, 张莹莹, 杨葆春, 等. 不同NFC/NDF饲粮对高原型藏羊肌肉营养成分、氨基酸及脂肪酸含量的影响[J]. 中国兽医学报, 2021, 41(9):1841-1847.

ZHOU L, ZHANG Y Y, YANG B C, et al. Effects of different NFC/NDF diets on nutritional components,amino acids and fatty acid contents of plateau type Tibetan sheep[J]. Chinese Journal of Veterinary Science, 2021, 41(9):1841-1847. (in Chinese)

[34]
ZHANG R Y, LIU J H, JIANG L S, et al. Effect of high-concentrate diets on microbial composition,function,and the VFAs formation process in the rumen of dairy cows[J]. Animal Feed Science and Technology, 2020, 269:114619.

DOI

[35]
杨小花, 苏宝根, 杨亦文, 等. 花生四烯酸分离纯化方法研究进展[J]. 粮食与油脂, 2006(2):13-16.

YANG X H, SU B G, YANG Y W, et al. Progress in the separation and purification of arachidonic acid[J]. Cereals & Oils, 2006(2):13-16. (in Chinese)

[36]
LOUGH D S, SOLOMON M B, RUMSEY T S, et al. Effects of dietary canola seed and soy lecithin in high-forage diets on performance,serum lipids,and carcass characteristics of growing ram lambs[J]. Journal of Animal Science, 1991, 69(8):3292-3298.

DOI

[37]
SCOLLAN N, HOCQUETTE J F, NUERNBERG K, et al. Innovations in beef production systems that enhance the nutritional and health value of beef lipids and their relationship with meat quality[J]. Meat Science, 2006, 74(1):17-33.

DOI PMID

[38]
ZHANG M, SU R N, CORAZZIN M, et al. Lipid transformation during postmortem chilled aging in Mongolian sheep using lipidomics[J]. Food Chemistry, 2023, 405(Pt B):134882.

[39]
GAO C P, LI Q M, WEN H R, et al. Lipidomics analysis reveals the effects of Schizochytrium sp. supplementation on the lipid composition of Tan sheep meat[J]. Food Chemistry, 2025, 463(Pt 1):141089.

DOI

[40]
乌其尔·依热格吉牧. 苏尼特羊不同部位脂质代谢组分析[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2019.

WUQIER Y.Analysis of lipid metabolism in different parts of Sunit sheep[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2019. (in Chinese).

[41]
LIEN E L. The role of fatty acid composition and positional distribution in fat absorption in infants[J]. The Journal of Pediatrics, 1994, 125(5 Pt 2):S62-S68.

DOI

[42]
SOKOŁA-WYSOCZAÑSKA E, WYSOCZAÑSKI T, WAGNER J, et al. Polyunsaturated fatty acids and their potential therapeutic role in cardiovascular system disorders-a review[J]. Nutrients, 2018, 10(10):1561.

DOI

[43]
HOU X H, ZHANG R, YANG M, et al. Metabolomics and lipidomics profiles related to intramuscular fat content and flavor precursors between Laiwu and Yorkshire pigs[J]. Food Chemistry, 2023, 404(Pt A):134699.

[44]
CAO Z, XU M D, QI S Z, et al. Lipidomics reveals lipid changes in the intramuscular fat of geese at different growth stages[J]. Poultry Science, 2024, 103(1):103172.

DOI

[45]
冉世前, 朱云芬, 徐淑玲, 等. 磷脂结构、膳食来源及营养学研究进展[J]. 中国油脂, 2022, 47(1):68-74,88.

RAN S Q, ZHU Y F, XU S L, et al. Progress on structure,dietary source and nutrition of phospholipid[J]. China Oils and Fats, 2022, 47(1):68-74,88. (in Chinese)

文章导航

/