研究论文

过瘤胃牛磺酸对热应激杂交赣西山羊抗氧化能力及肠道屏障功能的影响

  • 王毅杰 , 1 ,
  • 卢顾伟 1 ,
  • 刘鑫 1 ,
  • 李艳娇 1 ,
  • 邱清华 1 ,
  • 赵向辉 1 ,
  • 柳焕强 2 ,
  • 江建安 3 ,
  • 袁勇 3 ,
  • 欧阳克蕙 , 1, * ,
  • 刘继明 , 4, *
展开
  • 1 江西农业大学动物科学技术学院, 动物营养与饲料江西省重点实验室, 南昌 330045
  • 2 上栗县农业农村局, 萍乡 337009
  • 3 上栗县康鑫农业发展有限公司, 萍乡 337009
  • 4 江西省农业技术推广中心, 南昌 330046
* 欧阳克蕙,教授,博士生导师,E-mail: ;
刘继明,高级畜牧兽医师,E-mail:

王毅杰(2001—),男,江西樟树人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 靳爽

收稿日期: 2026-01-15

  网络出版日期: 2026-09-12

基金资助

国家自然科学基金(32160807)

国家自然科学基金(32260861)

江西省重点研发计划项目(20232BBF60009)

江西省重点研发计划项目(20232BBF60010)

2024年度江西省农牧渔业科研指导性课题(赣农厅办函[2024]12号)

Effects of Rumen-Protected Taurine on Antioxidant Capacity and Intestinal Barrier Function of Heat-Stressed Hybrid Ganxi Goats

  • WANG Yijie , 1 ,
  • LU Guwei 1 ,
  • LIU Xin 1 ,
  • LI Yanjiao 1 ,
  • QIU Qinghua 1 ,
  • ZHAO Xianghui 1 ,
  • LIU Huanqiang 2 ,
  • JIANG Jian’an 3 ,
  • YUAN Yong 3 ,
  • OUYANG Kehui , 1, * ,
  • LIU Jiming , 4, *
Expand
  • 1 Jiangxi Key Laboratory of Animal Nutrition and Feed, College of Animal Science and Technology, Jiangxi Agricultural University, Nanchang 330045, China
  • 2 Shangli County Agricultural and Rural Bureau, Pingxiang 337009, China
  • 3 Shangli Kangxin Agricultural Development Co., Ltd., Pingxiang 337009, China
  • 4 Jiangxi Agricultural Technology Extension Center, Nanchang 330046, China
* OUYANG Kehui, professor, E-mail: ;
LIU Jiming, senior veterinarian, E-mail:

Received date: 2026-01-15

  Online published: 2026-09-12

摘要

本试验旨在探究过瘤胃牛磺酸(RP-TAU)对热应激杂交赣西山羊抗氧化能力及肠道屏障功能的影响。选取24只健康状况良好且体重[(20.45±2.95) kg]相近的5月龄杂交赣西山羊公羔,随机分为2组,每组12只,单栏饲养。试验期间所有羊只均处于中度热应激环境中。对照组(CON组)饲喂基础饲粮,牛磺酸组(TAU组)在饲喂基础饲粮的基础上添加0.4% RP-TAU。预试期7 d,正试期60 d。结果表明:1)与CON组相比,TAU组血清总超氧化物歧化酶(T-SOD)及谷胱甘肽过氧化物酶(GSH-Px)活性显著升高(P<0.05),血清丙二醛(MDA)含量显著降低(P<0.05);空肠黏膜总抗氧化能力(T-AOC)显著升高(P<0.05)。2)与CON组相比,TAU组血清白细胞介素-1β(IL-1β)、白细胞介素-2(IL-2)、白细胞介素-6(IL-6)、白细胞介素-17(IL-17)及免疫球蛋白A(IgA)含量显著降低(P<0.05)。3)与CON组相比,TAU组十二指肠和空肠绒隐比显著升高(P<0.05);十二指肠、空肠和回肠闭合蛋白(Occludin)及回肠封闭蛋白-4(Claudin-4)的mRNA相对表达量显著升高(P<0.05)。综上所述,饲粮添加0.4% RP-TAU可通过增强机体抗氧化能力、抑制炎症反应来改善热应激杂交赣西山羊的肠道屏障功能。

本文引用格式

王毅杰 , 卢顾伟 , 刘鑫 , 李艳娇 , 邱清华 , 赵向辉 , 柳焕强 , 江建安 , 袁勇 , 欧阳克蕙 , 刘继明 . 过瘤胃牛磺酸对热应激杂交赣西山羊抗氧化能力及肠道屏障功能的影响[J]. 动物营养学报, 2026 , 38(9) : 6814 -6825 . DOI: 10.12418/CJAN2026.545

Abstract

This experiment was conducted to investigate the effects of rumen-protected taurine (RP-TAU) on antioxidant capacity and intestinal barrier function of heat-stressed hybrid Ganxi goats. A total of 24 healthy 5-month-old male hybrid Ganxi goat lambs with similar body weight [(20.45±2.95) kg] were selected and randomly divided into 2 groups with 12 replicates per group, raised in individual pens. All goats were kept under moderate heat-stress conditions throughout the experiment. The control group (CON group) was fed a basal diet, while the taurine group (TAU group) received the basal diet supplemented with 0.4% RP-TAU. The pre-trial period lasted 7 d, and the formal trial period lasted 60 d. The results showed as follows: 1) compared with the CON group, the serum total superoxide dismutase (T-SOD) and glutathione peroxidase (GSH-Px) activities were significantly increased (P<0.05), the serum malondialdehyde (MDA) content was significantly decreased (P<0.05), and the total antioxidant capacity (T-AOC) of jejunal mucosa was significantly increased in the TAU group (P<0.05). 2) Compared with the CON group, the serum interleukin-1β (IL-1β), interleukin-2 (IL-2), interleukin-6 (IL-6), interleukin-17 (IL-17) and immunoglobulin A (IgA) contents were significantly decreased in the TAU group (P<0.05). 3) Compared with the CON group, the villus height/crypt depth ratio of duodenum and jejunum was significantly increased in the TAU group (P<0.05); meanwhile, the mRNA relative expression levels of Occludin in duodenum, jejunum and ileum, as well as Claudin-4 in ileum were significantly upregulated in the TAU group (P<0.05). In conclusion, dietary supplemented with 0.4% RP-TAU can improve intestinal barrier function in heat-stressed hybrid Ganxi goats by boosting systemic antioxidant capacity and suppressing inflammatory responses.

热应激是制约动物生产性能的关键环境因素之一,尤其是在我国南方地区,高温高湿叠加使动物更易受到热应激的负面影响[1]。研究表明,热应激会严重扰乱动物的生理机能,导致肠道健康受损[2]。高温高湿条件下,机体血液更多向体表分流用于散热,导致肠道缺血、肠道上皮细胞线粒体功能障碍,同时活性氧(ROS)生成激增,进而破坏机体抗氧化防御系统,诱发脂质过氧化反应,激活核因子-κB(NF-κB)等炎症通路,并进一步促进肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)等促炎因子释放[2]。ROS与过量促炎因子会降解肠道紧密连接蛋白,增加肠道通透性,使得肠道组织结构被破坏,屏障功能受损[3],进而导致动物养分消化率降低、生产性能下降、繁殖机能受损,严重时甚至导致死亡[4-6]。营养调控是提升机体抗氧化、抗炎水平,缓解热应激的有效途径之一[7]。牛磺酸(TAU,化学名称为2-氨基乙磺酸)为含硫非必需氨基酸,在动物体内以游离态存在,其不参与蛋白质合成,也不构成直接能源,但可调控机体多项基础代谢过程,尤其是在抗氧化与抗炎过程中发挥重要作用[8]。在反刍动物营养研究中,TAU的作用日益受到关注[9]。然而,由于瘤胃独特的发酵环境,外源添加的普通TAU易在瘤胃中被降解[10],难以进入后消化道发挥直接生理效应,因此过瘤胃保护技术(如包被等处理)的应用至关重要[11]。赣西山羊是江西优良的地方山羊品种,肉质鲜嫩、耐粗饲,在南方地区深受消费者喜爱[12],但其生长性能易受热应激抑制[13]。本课题组前期研究发现,饲粮添加过瘤胃牛磺酸(RP-TAU)可显著提高热应激杂交赣西山羊的采食量与平均日增重,并能改善肉品质[14]。但前期研究仅聚焦RP-TAU对山羊生长表观指标及肌肉能量代谢的调控机制,尚未明确其在热应激诱导氧化应激、炎症反应及肠道屏障损伤中的调控作用。因此,本研究以杂交赣西山羊为研究对象,重点探究饲粮添加RP-TAU对热应激山羊抗氧化能力及肠道屏障功能的影响,以期为RP-TAU在反刍动物生产中的科学应用提供参考。

1 材料与方法

1.1 试验材料

TAU(纯度99.8%)为市购产品。RP-TAU委托杭州康德全饲料有限公司加工制备,产品包被率为61.4%,12 h过瘤胃率为91.2%,12 h小肠溶出率为86.3%。

1.2 试验设计及饲养管理

动物试验于2024年7—9月在江西省萍乡市上栗县开展。试验方案经江西农业大学实验动物福利伦理委员会批准,批准号:JXAULL-2024-07-05。选取24只健康状况良好且体重[(20.45±2.95) kg]相近的5月龄杂交赣西山羊公羔,随机分为2组,每组12只,单栏饲养。对照组(CON组)饲喂基础饲粮,牛磺酸组(TAU组)在饲喂基础饲粮基础上添加0.4% RP-TAU。预试期7 d,正试期60 d。基础饲粮参照《肉羊营养需要量》(NY/T 816—2021)配制,精粗比约为6∶4,基础饲粮组成及营养水平见表1。试验期间保证所有羊只饲养管理条件一致,每日于08:00和16:00各饲喂1次,自由采食和饮水。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
花生秧Peanut straw 40.00 代谢能ME/(MJ/kg) 9.79
玉米Corn 30.00 干物质DM 92.03
麦麸Wheat bran 9.50 粗蛋白质CP 16.02
豆粕Soybean meal 15.00 粗脂肪EE 4.92
石粉Limestone 0.50 中性洗涤纤维NDF 34.58
磷酸氢钙CaHPO4 0.50 酸性洗涤纤维ADF 16.12
食盐NaCl 0.50 粗灰分Ash 10.53
碳酸氢钠NaHCO3 1.00
预混料Premix1) 3.00
合计Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 200 000 IU,VD3 30 000 IU,VE 600 mg,Cu (as copper sulfate) 50 mg,Mn (as manganese sulfate) 600 mg,Zn (as zinc sulfate) 1 000 mg,I (as potassium iodide) 6 mg,Se (as sodium selenite) 2 mg。

2)代谢能为参考《肉羊营养需要量》(NY/T 816—2021)所得计算值,其余为实测值。ME was a calculated value according to Nutritional Requirements of Meat-Type Sheep and Goat (NY/T 816—2021), while the others were measured values.

1.3 羊舍温度、相对湿度及温湿度指数(THI)

将温湿度记录仪置于羊舍中心距地面1.0 m高度,每日分别于07:30、14:30、22:30在栏舍不同位置采集温度、相对湿度数据,每个时间点测定3次并取平均值。THI计算公式为:THI=(1.8×Td+32)-[(0.55-0.005 5×RH)×(1.8×Td-26.8)]。式中:Td为羊舍温度(℃);RH为羊舍相对湿度(%)。热应激程度判定标准:72<THI≤80为轻度热应激,80<THI≤90为中度热应激,THI>90为重度热应激[15]。试验期间羊舍温度、相对湿度及THI见表2,羊只均处于中度热应激环境中。
表2 羊舍温度、相对湿度及THI

Table 2 Temperature, relative humidity and THI of sheep house

时间
Time
平均温度
Average temperature/℃
平均相对湿度
Average relative humidity/%
温湿度指数
THI
热应激程度
Heat stress intensity
07:30 29.68 75.68 81.86 中度
14:30 34.39 61.13 86.40 中度
22:30 28.38 78.56 80.22 中度

1.4 样品采集

试验期间,每周固定时间采集饲粮样品,采样方法参照GB/T 14699—2023,样品经干燥、粉碎处理后于-20 ℃保存备用。正试期第60天晨饲前,每组挑选6只体重接近该组平均体重的山羊,颈静脉采血并做好个体标记。血样室温静置30 min后,以3 200×g离心10 min,分离上层血清并分装,置于-20 ℃保存待测。试验结束次日对标记山羊放血屠宰,剖开腹腔后分别截取十二指肠、空肠、回肠中段约4 cm肠段,置于4%多聚甲醛溶液中固定;另取肠段,以生理盐水冲净肠道内容物,用洁净载玻片刮取肠道黏膜样品,迅速投入液氮速冻,随后转移至-80 ℃保存待测。

1.5 测定指标及方法

1.5.1 饲粮营养成分含量

饲粮中干物质(DM)、粗蛋白质(CP)、粗脂肪(EE)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)和粗灰分(Ash)含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2025、GB/T 20806—2022、NY/T 1459—2022和GB/T 6438—2007的方法进行测定。

1.5.2 血清应激和抗氧化指标

使用南京建成生物工程研究所生产的试剂盒测定血清皮质酮(CORT)和丙二醛(MDA)含量、总抗氧化能力(T-AOC)及总超氧化物歧化酶(T-SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性,具体操作步骤参照试剂盒说明书。

1.5.3 血清免疫球蛋白和炎症因子含量

使用上海酶联生物科技有限公司生产的酶联免疫吸附试验(ELISA)试剂盒测定血清免疫球蛋白A(IgA)、免疫球蛋白M(IgM)、免疫球蛋白G(IgG)、白细胞介素-1β(IL-1β)、白细胞介素-2(IL-2)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)、白细胞介素-17(IL-17)和肿瘤坏死因子-α(TNF-α)含量,具体操作步骤参照试剂盒说明书。

1.5.4 肠道黏膜抗氧化指标

使用南京建成生物工程研究所生产的试剂盒测定肠道黏膜MDA含量、T-AOC及T-SOD、GSH-Px、过氧化氢酶(CAT)活性,具体操作步骤参照试剂盒说明书。

1.5.5 肠道形态结构

取经4%多聚甲醛固定24 h的十二指肠、空肠和回肠组织,用流水缓慢冲洗48 h,经梯度乙醇脱水后进行石蜡包埋,制作厚度4 μm切片,每个肠道组织制备6张切片。切片脱蜡后置于烘片机烘干2 h,冷却至室温后进行苏木精-伊红(HE)染色,借助显微成像系统观察并采集图像。采用Case Viewer软件随机选取5个视野,测定绒毛高度与隐窝深度,并计算绒毛高度与隐窝深度比值(绒隐比)。

1.5.6 肠道紧密连接蛋白实时荧光定量PCR(qRT-PCR)检测

提取十二指肠、空肠及回肠黏膜总RNA,按照EVO-M-MLV反转录试剂盒(湖南艾科瑞生物工程有限公司)说明书操作,将各组织样本的总RNA反转录合成cDNA,以cDNA为模板进行qRT-PCR扩增。反应体系20 μL:2×SYBR Green Ⅱ PCR Mix 10 μL,cDNA模板1 μL,上、下游引物(引物序列见表3)各0.8 μL,ddH2O 7.4 μL。反应程序:95 ℃预变性3 min;95 ℃变性 30 s,退火40 s,72 ℃延伸 30 s,40个循环。每个样品设置3个重复。收集到的数据经Excel 2021整理后,以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表3 引物序列

Table 3 Primer sequences

基因名称
Gene names
引物序列
Primer sequences (5'—3')
登录号
Accession number
β-肌动蛋白β-actin F:CCCTGGAGAAGAGCTACGAG
R:CAGGAAGGAAGGCTGGAAGA
NM_001009784.3
封闭蛋白-4 Claudin-4 F:CTCAAAGCCACCTCCAACAC
R:TCCACAGCCATTCAGAGGAG
XM_069571085.1
封闭蛋白-7 Claudin-7 F:TCCTGGGAGTGAGAGCAAAG
R:TACTCCTTGGCAGAGTTGGG
XM_069603305.1
闭合蛋白Occludin F:ACCTCTCCTCCCGGAGTAAT
R:ATGCTGCCTCCCATTAAGGT
XM_069556237.1
闭锁小带蛋白-1 ZO-1 F:GGCAATGGTTAATGGCGTCT
R:CAGGTTCAGGATCAGGACGA
XM_042235170.2

1.6 数据统计分析

试验数据经Excel 2021初步处理后,采用SPSS 24.0软件进行独立样本t检验分析组间差异。结果以平均值和均值标准误(SEM)表示,P<0.05表示差异显著。

2 结果与分析

2.1 RP-TAU对热应激山羊血清应激和抗氧化指标的影响

表4可知,与CON组相比,TAU组血清T-SOD及GSH-Px活性均显著升高(P<0.05),血清MDA含量显著降低(P<0.05),血清皮质醇含量与T-AOC无显著变化(P>0.05)。
表4 RP-TAU对热应激山羊血清应激和抗氧化指标的影响

Table 4 Effects of RP-TAU on serum stress and antioxidant indicators of heat-stressed goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON TAU
皮质醇Cortisol/(ng/mL) 49.13 45.58 0.914 0.081
丙二醛MDA/(nmol/mL) 2.25 1.99 0.055 0.040
总抗氧化能力T-AOC/(U/mL) 9.00 9.15 0.127 0.554
总超氧化物歧化酶T-SOD/(U/mL) 79.48 88.58 1.128 0.002
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 137.34 146.80 1.876 0.030

2.2 RP-TAU对热应激山羊血清免疫球蛋白和炎症因子含量的影响

表5可知,与CON组相比,TAU组血清IL-1β、IL-2、IL-6、IL-17及IgA含量均显著降低(P<0.05),血清IL-10、TNF-α、IgM及IgG含量无显著变化(P>0.05)。
表5 RP-TAU对热应激山羊血清免疫球蛋白和炎症因子含量的影响

Table 5 Effects of RP-TAU on serum immunoglobulin and inflammatory factor contents of heat-stressed goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON TAU
免疫球蛋白Immunoglobulin/(g/L)
免疫球蛋白A IgA 2.00 0.65 0.253 0.024
免疫球蛋白G IgG 19.94 15.98 1.352 0.173
免疫球蛋白M IgM 1.18 0.54 0.154 0.065
炎症因子Inflammatory factors/(pg/mL)
白细胞介素-1β IL-1β 26.26 21.50 0.584 0.002
白细胞介素-2 IL-2 279.01 239.88 1.923 0.001
白细胞介素-6 IL-6 176.45 168.86 1.327 0.017
白细胞介素-10 IL-10 10.82 12.23 0.325 0.055
白细胞介素-17 IL-17 25.61 23.00 0.386 0.007
肿瘤坏死因子-α TNF-α 56.87 51.25 1.362 0.066

2.3 RP-TAU对热应激山羊肠道黏膜抗氧化指标的影响

表6可知,与CON组相比,TAU组空肠黏膜T-AOC显著升高(P<0.05),空肠黏膜MDA含量及T-SOD、GSH-Px、CAT活性无显著变化(P>0.05),十二指肠及回肠黏膜MDA含量、T-AOC及T-SOD、GSH-Px、CAT活性均无显著变化(P>0.05)。
表6 RP-TAU对热应激山羊肠道黏膜抗氧化指标的影响

Table 6 Effects of RP-TAU on intestinal mucosal antioxidant indicators of heat-stressed goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON TAU
十二指肠Duodenum
丙二醛MDA/(nmol/mg prot) 6.60 7.80 1.147 0.616
总抗氧化能力T-AOC/(mmol/g prot) 0.37 0.34 0.027 0.651
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 104.48 123.14 22.742 0.690
总超氧化物歧化酶T-SOD/(U/mg prot) 97.90 104.19 7.056 0.665
过氧化氢酶CAT/(U/mg prot) 345.44 212.20 45.169 0.171
空肠Jejunum
丙二醛MDA/(nmol/mg prot) 17.35 12.15 4.620 0.586
总抗氧化能力T-AOC/(mmol/g prot) 0.29 0.39 0.021 0.037
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 178.45 123.21 28.918 0.362
总超氧化物歧化酶T-SOD/(U/mg prot) 110.99 86.67 7.184 0.121
过氧化氢酶CAT/(U/mg prot) 132.37 118.61 20.010 0.738
回肠Ileum
丙二醛MDA/(nmol/mg prot) 5.32 4.31 0.597 0.419
总抗氧化能力T-AOC/(mmol/g prot) 0.43 0.47 0.027 0.487
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 175.84 297.54 44.821 0.204
总超氧化物歧化酶T-SOD/(U/mg prot) 93.15 96.59 5.417 0.757
过氧化氢酶CAT/(U/mg prot) 31.15 39.76 2.074 0.065

2.4 RP-TAU对热应激山羊肠道形态结构的影响

表7可知,与CON组相比,TAU组十二指肠绒毛高度无显著变化(P>0.05),隐窝深度显著降低(P<0.05),绒隐比显著升高(P<0.05);空肠绒毛高度显著升高(P<0.05),隐窝深度无显著变化(P>0.05),绒隐比显著升高(P<0.05);回肠绒毛高度、隐窝深度及绒隐比均无显著变化(P>0.05)。
表7 RP-TAU对热应激山羊肠道形态结构的影响

Table 7 Effects of RP-TAU on intestinal morphology of heat-stressed goats

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON TAU
十二指肠Duodenum
绒毛高度Villus height/μm 934.00 1 027.40 62.723 0.097
隐窝深度Crypt depth/μm 230.00 166.00 15.343 0.004
绒隐比V/C 4.10 6.38 0.305 0.005
空肠Jejunum
绒毛高度Villus height/μm 786.30 1 117.60 93.221 0.002
隐窝深度Crypt depth/μm 294.60 271.30 32.876 0.440
绒隐比V/C 2.83 4.22 0.334 0.002
回肠Ileum
绒毛高度Villus height/μm 713.80 761.40 37.534 0.526
隐窝深度Crypt depth/μm 256.90 282.30 17.578 0.458
绒隐比V/C 2.70 2.56 0.623 0.821

2.5 RP-TAU对热应激山羊肠道紧密连接蛋白基因表达的影响

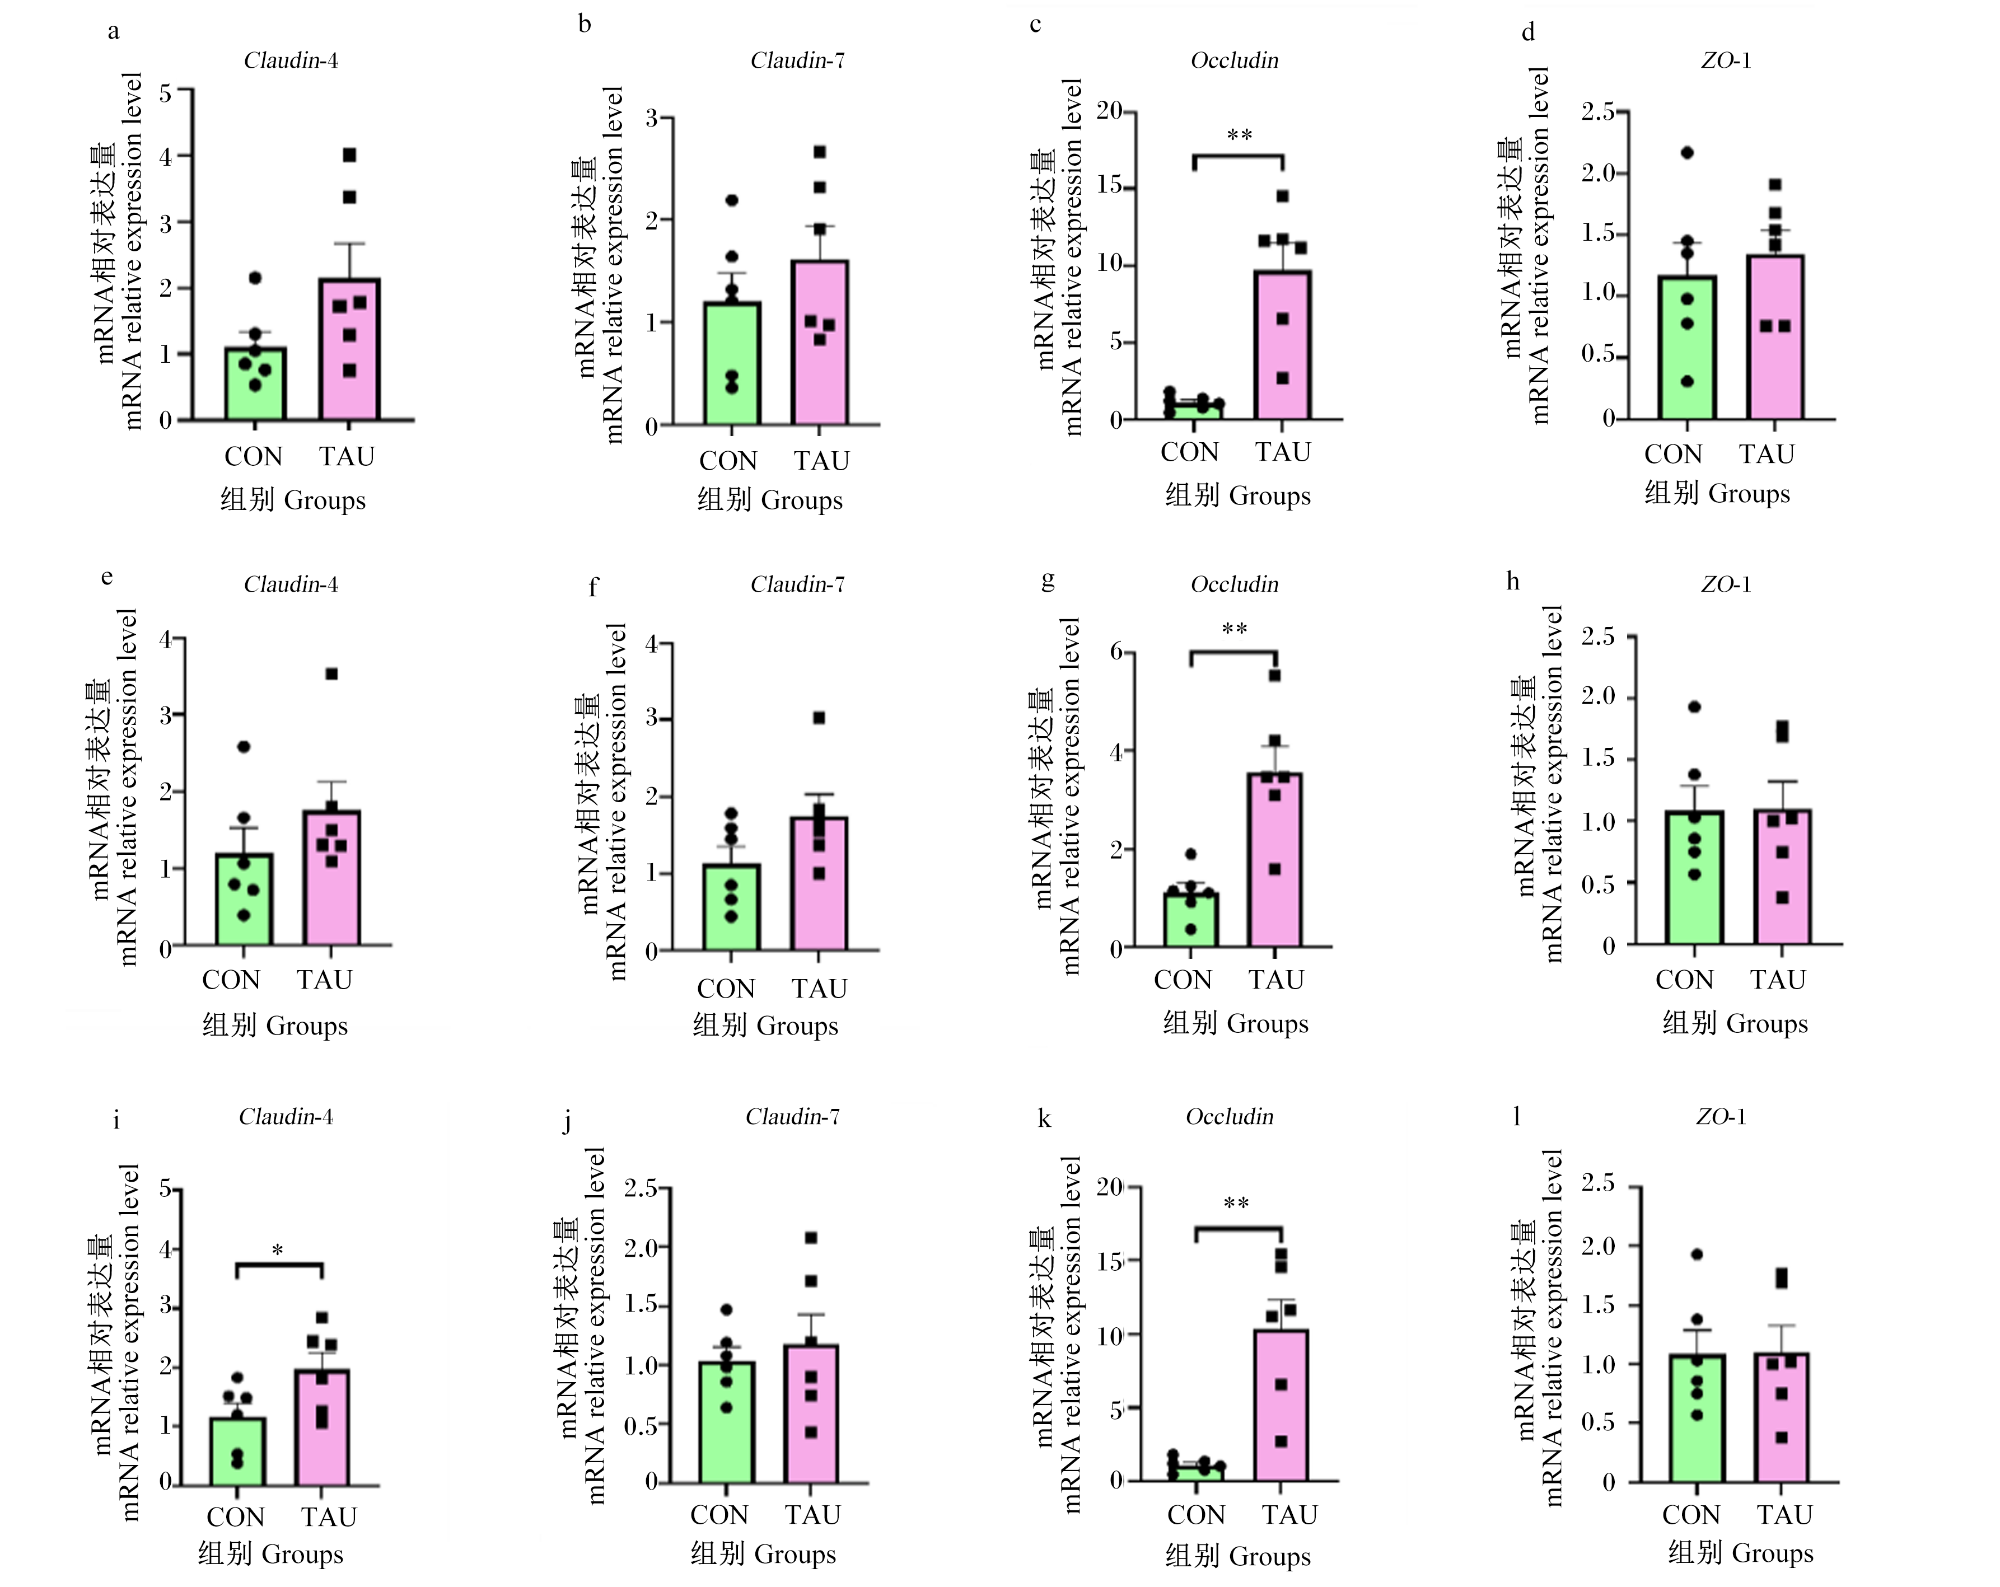
图1可知,与CON组相比,TAU组十二指肠、空肠及回肠闭合蛋白(Occludin)的mRNA相对表达量均显著升高(P<0.05),回肠封闭蛋白-4(Claudin-4)的mRNA相对表达量显著升高(P<0.05),各肠段封闭蛋白-7(Claudin-7)和闭锁小带蛋白-1(ZO-1)的mRNA相对表达量均无显著变化(P>0.05)。
图1 RP-TAU对热应激山羊肠道紧密连接蛋白基因表达的影响

Claudin-4:封闭蛋白-4;Claudin-7:封闭蛋白-7;Occludin:闭合蛋白;ZO-1:闭锁小带蛋白-1 zonula occludens-1。

Fig.1 Effects of RP-TAU on expression of intestinal tight junction protein genes of heat-stressed goats

a~d:十二指肠;e~h:空肠;i~l:回肠。*表示P<0.05,**表示P<0.01。a to d: duodenum; e to h: jejunum; i to l: ileum. * represented P<0.05, and ** represented P<0.01.

3 讨论

3.1 RP-TAU对热应激杂交赣西山羊血清和肠道抗氧化能力的影响

在反刍动物热应激评估体系中,THI是应用最为广泛的量化评价指标[16]。现有分级标准普遍认为,当72<THI≤80时,机体处于轻度热应激状态,当80<THI≤90和THI>90时,分别代表处于中度和重度热应激状态[15]。本试验全程持续监测羊舍环境温度和相对湿度并计算THI,结果显示试验期间羊舍THI持续高于80,试验山羊全程处于中度热应激环境。热应激属于典型氧化应激,会特异性抑制机体抗氧化防御系统[17-18]。高温环境下动物体内氧化反应加剧,氧化与抗氧化稳态失衡,会释放大量的ROS,进而下调机体组织中超氧化物歧化酶(SOD)、GSH-PxCAT等抗氧化酶的表达并降低其活性,使得T-AOC下降,同时提高皮质酮、MDA含量[19-21]。TAU可通过多途径、多靶点介导抗氧化调控,其作用机制复杂,能够激活G蛋白偶联胆汁酸受体5(TGR5)-磷脂酰肌醇3-激酶(PI3K)/蛋白激酶B(AKT)-固醇调节元件结合蛋白2(SREBP2)等信号通路,调节机体抗氧化酶系统,缓解机体氧化应激损伤[22]。Li等[23]研究发现,饲粮添加40 mg/kg RP-TAU可显著提高重度热应激状态下湖羊血清SOD、GSH-Px活性,同时显著降低血清MDA含量;体外培养热应激诱导牛乳腺上皮细胞的试验同样表明,添加100 mmol/L TAU能够显著降低细胞内MDA含量,并显著提高细胞内SOD、GSH-Px活性[24]。TAU的抗氧化作用机制非常复杂,因此其在不同添加剂量、不同动物生理状态下表现不一。卢梁豪[25]研究发现,在牦牛饲粮中添加20~40 g/d RP-TAU(添加量0.4%~0.8%)时,20 g/d低剂量组血清T-AOC显著高于对照组与40 g/d 高剂量组,说明低剂量RP-TAU可有效提升牦牛抗氧化能力,而高剂量补充无明显增效作用[25]。也有研究表明,饲粮添加400 mg/kg RP-TAU对热应激湖羊的血清抗氧化水平和生长性能并无显著改善作用[26]。本试验结果显示,饲粮添加0.4% RP-TAU可使热应激杂交赣西山羊血清T-SOD、GSH-Px活性显著升高,血清MDA含量显著降低,与上述多数研究结论一致;但血清T-AOC未出现显著变化,推测该差异来源于试验动物种类、热应激程度等生理条件的不同。
肠道黏膜抗氧化水平能够直观反映肠道氧化应激状态,肠道黏膜抗氧化能力下降是诱发肠道损伤的重要指标,特别是在热应激条件下,氧化应激与内质网应激的相互作用是导致肠屏障损伤的核心病理机制[27]。本试验结果显示,饲粮添加0.4% RP-TAU可使热应激杂交赣西山羊空肠黏膜T-AOC显著提高,对其他肠段的抗氧化指标无显著影响,提示RP-TAU可能有助于缓解空肠的氧化应激,且具有特异性。该肠段特异性效应,除试验动物、生理状态差异外,可能还与各肠段固有生理功能、代谢活性及应激敏感度不同有关[28]。空肠是机体营养物质吸收的主要场所,其黏膜上皮细胞代谢极为活跃、供血丰富、线粒体密度高,导致其基础氧耗量和ROS生成量相对较高[29]。本试验中仅空肠黏膜T-AOC得到显著改善,提示RP-TAU可优先在氧化负荷更高的肠段发挥抗氧化保护作用。其对整个肠道组织结构完整性的保护效果,仍需结合更多组织形态学指标进一步验证。

3.2 RP-TAU对热应激杂交赣西山羊血清免疫球蛋白和炎症因子含量的影响

在热应激条件下,机体的免疫调控网络与炎症反应通路同样会发生深刻变化,并与氧化应激相互加剧,共同导致组织损伤。多项研究表明,动物在季节性热应激下,其免疫相关Toll样受体表达会发生显著改变,进而通过激活NF-κB信号通路,引发IL-6、IL-1β、TNF-α等促炎细胞因子的级联释放,这些因子相互正反馈刺激,并与IL-17协同作用,共同放大炎症反应,形成持续性的免疫应激[30-33]。TAU可直接减少ROS的积累,阻断NF-κB信号通路活化,进而抑制TNF-α、IL-1β等促炎因子分泌,在缓解机体炎症反应方面发挥重要作用[34]。此外,TAU还能通过调节免疫细胞功能,在维持免疫稳态中发挥关键作用[35]。前人研究表明,外源补充TAU既能增强体液免疫,又可抑制过度炎症反应:Zhao等[36]发现,牦牛补充20 g/d RP-TAU时血清IgA、IgG含量显著升高,而将添加量提升至40 g/d,上述指标反而无显著变化。此外,TAU可通过抑制NOD样受体热蛋白结构域3(NLRP3)炎症小体激活,从而抑制IL-1β及白细胞介素-18(IL-18)的释放[37]。有疟疾模型试验证实,1 mg TAU联合青蒿素(ART)处理,相较于单独使用等量青蒿素,可显著降低感染小鼠血清TNF-α、IL-6及IL-10含量[38]。本试验结果显示,相较于CON组,TAU组热应激杂交赣西山羊血清IL-1β、IL-2、IL-6、IL-17含量均显著降低,与前人研究结果相符;但TAU组血清IgA含量同步显著下降,与前人报道存在差异。这种差异可能来源于试验动物品种、热应激环境条件的不同,也可能是由于本试验中山羊尚处在热应激初期,及时补充RP-TAU提前阻断了炎症级联反应过度激活,避免了免疫系统的过度消耗,从而导致系统循环IgA含量未见升高、反而降低[39-40]。另有研究表明,TAU预处理能显著降低致敏原特异性免疫球蛋白E(IgE)和IgG抗体水平,同时保护肠道屏障、减轻组织损伤[41];IgA的完全缺失会直接破坏回肠的免疫稳态,引发自发性炎症[42];TAU还可直接调节B淋巴细胞的功能,从而调节免疫球蛋白的分泌[43]。本试验中TAU组山羊血清中IgA含量降低,并伴随着炎症反应减弱,可能表明机体免疫资源正进行重新分配,即从全身循环向肠道等主要应激界面聚集,这可能是黏膜免疫屏障启动积极修复与重构的一个动态信号。

3.3 RP-TAU对热应激杂交赣西山羊肠道屏障功能的影响

在热应激状态下,肠道会大量生成ROS,直接攻击肠上皮细胞,引发ATP耗竭、细胞酸中毒,进而破坏肠绒毛正常结构[44]。与此同时,TNF-α、IL-6等促炎因子可激活NF-κB信号通路,抑制上皮细胞增殖分化、减少细胞迁移数量[45],并下调ZO-1、OccludinClaudin-4 等紧密连接蛋白的表达,破坏肠上皮屏障完整性,最终造成绒隐比降低[46]。TAU可通过多重机制保障肠道功能完整性:一方面,通过清除ROS、增强抗氧化酶活性,减轻氧化应激对肠上皮细胞的直接损伤;另一方面,通过抑制NF-κB和NLRP3炎症小体信号通路,减少TNF-α、IL-1β、IL-6等促炎因子释放,缓解炎症反应对肠上皮的破坏。多项研究表明,TAU对维持小肠正常组织形态具有重要作用:对患肠黏膜炎小鼠补充TAU,可缓解肠黏膜炎症状、增强肠上皮紧密连接,并通过抑制NF-κB信号通路减轻炎症反应[47];饲粮添加TAU能够降低哺乳期及断奶仔猪十二指肠隐窝深度、提升绒隐比,并使空肠绒毛高度增加、绒隐比上升[48-49]。本试验结果直观地反映了RP-TAU在缓解热应激所致山羊肠道形态结构损伤方面的积极作用。绒隐比升高通常代表肠道营养吸收功能增强[50],这可能是RP-TAU改善热应激山羊整体生长性能的关键生理基础。本试验中空肠黏膜T-AOC的显著提升,也从生化层面解释了肠道形态得到改善的内在机制[51]
此外,TAU能促进OccludinClaudin-4等紧密连接蛋白表达,增强肠上皮屏障功能,减少肠道通透性,还可通过调节细胞能量代谢和离子稳态,维持肠上皮细胞正常增殖与分化,促进受损肠黏膜修复与再生[52]。Occludin是紧密连接的核心蛋白之一,主要维持肠上皮细胞间的机械连接,调控细胞旁通透性[53];Claudin-4同样为构成紧密连接的重要部分,主要形成屏障、降低细胞旁渗透性,从而增强肠道屏障密封功能[54]。TAU还能通过恢复昼夜节律核受体亚家族1D组成员1(Nr1d1)表达,直接增强肠道上皮紧密连接蛋白Occludin和封闭蛋白-1(Claudin-1)的表达[55];猪氧化应激模型试验同样证实,TAU可特异性上调回肠紧密连接蛋白Claudin-1、OccludinZO-1的表达[56]。上述研究均佐证,TAU能够正向调控肠道紧密连接蛋白的表达。血清促炎因子含量可间接反映肠道屏障功能状态,已有研究证实二者存在显著关联[57]。TAU通过抑制NF-κB等信号通路的激活,降低促炎因子含量,从而解除其对OccludinClaudin-4表达的抑制效应[58]。本试验结果显示,TAU组热应激杂交赣西山羊十二指肠、空肠及回肠Occludin的mRNA相对表达量较CON组显著上升,且回肠Claudin-4的mRNA相对表达量也显著上升。这表明RP-TAU可协同发挥抗氧化与抗炎双重作用,稳定细胞内环境、降低机体促炎因子含量,进而促进OccludinClaudin-4的表达,最终增强肠道物理屏障功能并改善其完整性。

4 结论

饲粮添加0.4% RP-TAU可显著提升热应激杂交赣西山羊血清T-SOD、GSH-Px活性,降低血清MDA含量,并显著提高空肠黏膜T-AOC;同时,还能显著下调血清促炎因子IL-1β、IL-2、IL-6、IL-17含量,上调十二指肠、空肠、回肠紧密连接蛋白Occludin及回肠Claudin-4的表达,优化肠道形态结构。综上所述,饲粮添加0.4% RP-TAU可通过增强机体抗氧化能力、抑制炎症反应,改善热应激杂交赣西山羊的肠道屏障功能。
[1]
何志勇, 孟祝, 蒋澳迪, 等. 热应激对肉羊生产的影响研究进展[J]. 中国畜牧杂志, 2022, 58(5):59-64.

HE Z Y, MENG Z, JIANG A D, et al. Research progress on the effect of heat stress on mutton sheep production[J]. Chinese Journal of Animal Science, 2022, 58(5):59-64. (in Chinese)

[2]
LIAN P Q, BRABER S, GARSSEN J, et al. Beyond heat stress: intestinal integrity disruption and mechanism-based intervention strategies[J]. Nutrients, 2020, 12(3):734.

DOI

[3]
SUN M S, LI Q, ZOU Z M, et al. The mechanisms behind heatstroke-induced intestinal damage[J]. Cell Death Discovery, 2024, 10(1):455.

DOI PMID

[4]
HUNG A T, LEURY B J, SABIN M A, et al. Dietary nano chromium picolinate can ameliorate some of the impacts of heat stress in cross-bred sheep[J]. Animal Nutrition, 2021, 7(1):198-205.

DOI PMID

[5]
CAPELA L G, LEITES I C, MATEUS L M, et al. Effects of seasonal chronic heat stress on body thermoregulation,cortisol release and uterine health in postpartum native alentejana and mertolenga beef cattle[J]. BMC Veterinary Research, 2025, 21(1):404.

DOI

[6]
ZHANG Z H, ZHAO G R, NIU S, et al. Gastrointestinal microorganisms and blood metabolites in Holstein calves with different heat stress responses in the same hot environment[J]. Microorganisms, 2025, 13(4):801.

DOI

[7]
LI S, WANG X S, LIU G Y, et al. Methionine modulates the growth and development of heat-stressed dermal papilla cells via the wnt/β-catenin signaling pathway[J]. International Journal of Molecular Sciences, 2025, 26(4):1495.

DOI

[8]
BALIOU S, ADAMAKI M, IOANNOU P, et al. Protective role of taurine against oxidative stress (review)[J]. Molecular Medicine Reports, 2021, 24(2):605.

DOI

[9]
刘新宇, 栾嘉明, 冯鑫, 等. 牛磺酸的生物学功能及其在动物生产中的应用研究进展[J]. 动物营养学报, 2025, 37(11):7285-7297.

DOI

LIU X Y, LUAN J M, FENG X, et al. Research progress on biological functions of taurine and its application in animal production[J]. Chinese Journal of Animal Nutrition, 2025, 37(11):7285-7297. (in Chinese)

DOI

[10]
刘禹彤, 李通, 王奕涵, 等. 利用体外法研究不同浓度牛磺酸对瘤胃发酵的影响[J]. 延边大学农学学报, 2025, 47(2):37-42.

LIU Y T, LI T, WANG Y H, et al. Evaluating impacts of different concentrations of taurine on ruminal fermentation using an in vitro method[J]. Journal of Agricultural Science Yanbian University, 2025, 47(2):37-42. (in Chinese)

[11]
ZHANG S, HU J M, LIU Y F, et al. Taurine drives body protein renewal and accretion in beef steers[J]. Animal Nutrition, 2024, 19:1-12.

DOI PMID

[12]
江浩筠, 占今舜, 贾浩滨, 等. 赣西山羊品种介绍与现状研究[J]. 中国畜禽种业, 2024, 20(2):56-61.

JIANG H Y, ZHAN J S, JIA H B, et al. Introduction and current status research of Ganxi goat breed[J]. The Chinese Livestock and Poultry Breeding, 2024, 20(2):56-61. (in Chinese)

[13]
何玉强, 李耀坤, 杨新月, 等. 山羊热应激研究进展[J]. 中国畜牧兽医, 2018, 45(4):1120-1126.

DOI

HE Y Q, LI Y K, YANG X Y, et al. Research advances on heat stress in goats[J]. China Animal Husbandry & Veterinary Medicine, 2018, 45(4):1120-1126. (in Chinese)

[14]
LU G W, WANG Y J, WEI Y T, et al. Dietary rumen-protected taurine enhances growth performance and meat quality in heat-stressed crossbred Gan-xi goats via modulating GLUT4/PYGM-mediated muscle energy metabolism[J]. Foods, 2025, 14(19):3323.

DOI

[15]
李赵嘉, 孟然, 杨文娇, 等. 蒲公英水提物对热应激条件下奶牛产奶性能、血清生化指标、乳中体细胞数及粪便微生物多样性的影响[J]. 动物营养学报, 2024, 36(2):1003-1019.

DOI

LI Z J, MENG R, YANG W J, et al. Effects of dandelion water extract on milk production performance,serum biochemical indexes,milk somatic cell count and fecal microbial diversity of dairy cows under heat stress[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):1003-1019. (in Chinese)

[16]
PINTO S, HOFFMANN G, AMMON C, et al. Critical THI thresholds based on the physiological parameters of lactating dairy cows[J]. Journal of Thermal Biology, 2020, 88:102523.

DOI

[17]
SHI L L, XU Y Q, MAO C Y, et al. Effects of heat stress on antioxidant status and immune function and expression of related genes in lambs[J]. International Journal of Biometeorology, 2020, 64(12):2093-2104.

DOI

[18]
DANSO F, IDDRISU L, LUNGU S E, et al. Effects of heat stress on goat production and mitigating strategies:a review[J]. Animals, 2024, 14(12):1793.

DOI

[19]
BEJAOUI B, SDIRI C, BEN SOUF I, et al. Physicochemical properties,antioxidant markers,and meat quality as affected by heat stress:a review[J]. Molecules, 2023, 28(8):3332.

DOI

[20]
SYAFIQA N N, ZULKIFLI I, ZUKI A B M, et al.Physiological, haematological and electroencephalographic responses to heat stress in Katjang and Boer goats[J]. Saudi Journal of Biological Sciences, 2023, 30(11):103836.

DOI

[21]
ZOU J W, WEI L L, MO Z H, et al. Impact of heat stress on ovarian function and circRNA expression in Hu sheep[J]. Animals, 2025, 15(14):2063.

DOI

[22]
ZHENG X J, ZHANG Y F, ZHANG L Y, et al. Taurolithocholic acid protects against viral haemorrhagic fever via inhibition of ferroptosis[J]. Nature Microbiology, 2024, 9(10):2583-2599.

DOI

[23]
LI B B, WU K, DUAN G Q, et al. Folic acid and taurine alleviate the impairment of redox status,immunity,rumen microbial composition and fermentation of lambs under heat stress[J]. Animals, 2024, 14(7):998.

DOI

[24]
BAI H, LI T T, YU Y, et al. Cytoprotective effects of taurine on heat-induced bovine mammary epithelial cells in vitro[J]. Cells, 2021, 10(2):258.

DOI

[25]
卢梁豪. 过瘤胃牛磺酸对牦牛生长性能、血液指标及代谢物的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2025.

LU L H.The effects of rumen-protected taurine on growth performance,blood parameters,and blood metabolites in yaks[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2025. (in Chinese)

[26]
董呈广, 石少英. 过瘤胃牛磺酸对热应激湖羊生长性能、血清生化指标及抗氧化能力的影响[J]. 中国饲料, 2025(18):5-8.

DONG C G, SHI S Y. The effects of rumen-protected taurine on growth performance,serum biochemical indicators and antioxidant capacity of heat-stressed Hu sheep[J]. China Feed, 2025(18):5-8. (in Chinese)

[27]
TANG Z N, YANG Y, WU Z L, et al. Heat stress-induced intestinal barrier impairment:current insights into the aspects of oxidative stress and endoplasmic reticulum stress[J]. Journal of Agricultural and Food Chemistry, 2023, 71(14):5438-5449.

DOI

[28]
ZHANG J, ZHANG S W, DU L H, et al. Spatiotemporal coordination between local flux and systemic homeostasis in the small intestine[J]. Trends in Endocrinology & Metabolism, 2026, 37(3):190-216.

[29]
LEVY E, MÉNARD D, DELVIN E, et al. Localization,function and regulation of the two intestinal fatty acid-binding protein types[J]. Histochemistry and Cell Biology, 2009, 132(3):351-367.

DOI

[30]
CARONNI N, LA TERZA F, VITTORIA F M, et al. IL-1β+ macrophages fuel pathogenic inflammation in pancreatic cancer[J]. Nature, 2023, 623(7986):415-422.

DOI

[31]
ASTUTI P K, BAGI Z, BODROGI L, et al. Hungarian indigenous tsigai,a promising breed for excellent heat tolerance and immunity[J]. Saudi Journal of Biological Sciences, 2023, 30(9):103747.

DOI

[32]
NARAZAKI M, KISHIMOTO T. The two-faced cytokine IL-6 in host defense and diseases[J]. International Journal of Molecular Sciences, 2018, 19(11):3528.

DOI

[33]
BERRY S P D G, DOSSOU C, KASHIF A, et al. The role of IL-17 and anti-IL-17 agents in the immunopathogenesis and management of autoimmune and inflammatory diseases[J]. International Immunopharmacology, 2022, 102:108402.

DOI

[34]
TAIRA M, SASAKI M, KIMURA S, et al. Ⅱ) Dose-dependent effects of Ni (ions on production of three inflammatory cytokines (TNF-alpha,IL-1beta and IL-6),superoxide dismutase (SOD) and free radical NO by murine macrophage-like RAW264 cells with or without LPS-stimulation[J]. Journal of Materials Science:Materials in Medicine, 2008, 19(5):2173-2178.

DOI

[35]
陈成英, 蓝利, 袁江浪, 等. 4-辛基衣康酸抑制糖酵解调控M2型巨噬细胞极化[J]. 广西医科大学学报, 2022, 39(4):577-582.

CHEN C Y, LAN L, YUAN J L, et al. 4-octylitaconic acid inhibits glycolysis and regulates the polarization of M2 macrophages[J]. Journal of Guangxi Medical University, 2022, 39(4):577-582. (in Chinese)

[36]
ZHAO S P, LU L H, CHEN Y Y, et al. Effects of rumen-protected taurine supplementation on ruminal fermentation,hematological profiles,liver function,and immune responses in yaks[J]. Animals, 2025, 15(13):1929.

DOI

[37]
ROSSI-SMITH P, KIM J, SKIRLO K, et al. Taurine transport is a critical modulator of ionic fluxes during NLRP3 inflammasome activation[J]. Cell Reports, 2025, 44(10):116317.

DOI

[38]
LI X, JIANG N, LI Q L, et al. Taurine potentiates artemisinin efficacy against malaria by modulating the immune response in Plasmodium berghei-infected mice[J]. Parasites & Vectors, 2024, 17(1):493.

[39]
ROJAS O L, PRÖBSTEL A K, PORFILIO E A, et al. Recirculating intestinal IgA-producing cells regulate neuroinflammation via IL-10[J]. Cell, 2019, 176(3):610-624.e18.

DOI PMID

[40]
OUYANG W J, RUTZ S, CRELLIN N K, et al. Regulation and functions of the IL-10 family of cytokines in inflammation and disease[J]. Annual Review of Immunology, 2011, 29:71-109.

DOI PMID

[41]
AÏNAD-TABET S, GRAR H, HADDI A, et al. Taurine administration prevents the intestine from the damage induced by beta-lactoglobulin sensitization in a murine model of food allergy[J]. Allergologia et Immunopathologia, 2019, 47(3):214-220.

DOI

[42]
NAGAISHI T, WATABE T, KOTAKE K, et al. Immunoglobulin A-specific deficiency induces spontaneous inflammation specifically in the ileum[J]. Gut, 2022, 71(3):487-496.

DOI

[43]
SONG W L, LI X Y, CAO H Y, et al. Taurine promotes B-cell activation by interaction with the VH/VL framework regions of B-cell receptor[J]. Immunology, 2023, 169(2):141-156.

DOI

[44]
HUANG Y H, MO S K, JIN Y, et al. Ammonia-induced excess ROS causes impairment and apoptosis in porcine IPEC-J2 intestinal epithelial cells[J]. Ecotoxicology and Environmental Safety, 2022, 243:114006.

DOI

[45]
KAI Y. Intestinal villus structure contributes to even shedding of epithelial cells[J]. Biophysical Journal, 2021, 120(4):699-710.

DOI PMID

[46]
马燕芬, 杜瑞平, 高民. 热应激对奶山羊瘤胃黏膜紧密连接蛋白表达的影响[J]. 动物营养学报, 2014, 26(3):768-775.

DOI

MA Y F, DU R P, GAO M. Effects of heat stress on expressions of tight junction proteins in ruminal mucosa of dairy goats[J]. Chinese Journal of Animal Nutrition, 2014, 26(3):768-775. (in Chinese)

[47]
WANG J J, WEI L Y, LIU C H, et al. Taurine treatment alleviates intestinal mucositis induced by 5-fluorouracil in mice[J]. Plant Foods for Human Nutrition, 2022, 77(3):399-404.

DOI PMID

[48]
CHEN J J, ZHANG X F, ZHANG Y H, et al. Taurine enhances growth performance by improving intestinal integrity and antioxidant capacity of weaned piglets[J]. Journal of Animal Science, 2024,102:skae311.

[49]
XU M M, CHE L, GAO K G, et al. Effects of dietary taurine supplementation to gilts during late gestation and lactation on offspring growth and oxidative stress[J]. Animals, 2019, 9(5):220.

DOI

[50]
SIGLEO S, JACKSON M J, VAHOUNY G V. Effects of dietary fiber constituents on intestinal morphology and nutrient transport[J]. The American Journal of Physiology, 1984, 246(1 Pt 1):G34-G39.

[51]
ZHANG R X, LI Q, ZHANG T, et al. Dietary grape pomace mediates jejunum epithelial apoptosis through antioxidative activity in ram lambs[J]. Italian Journal of Animal Science, 2019, 18(1):1058-1066.

DOI

[52]
刘事奇, 胡睿智, 李岩利, 等. 牛磺酸维护肠道健康的潜在作用机理及其在畜禽生产中的应用[J]. 动物营养学报, 2019, 31(11):5003-5011.

DOI

LIU S Q, HU R Z, LI Y L, et al. Taurine:potential mechanisms in maintaining intestinal health and application in livestock and poultry production[J]. Chinese Journal of Animal Nutrition, 2019, 31(11):5003-5011. (in Chinese)

[53]
KUO W T, ODENWALD M A, TURNER J R, et al. Tight junction proteins occludin and ZO-1 as regulators of epithelial proliferation and survival[J]. Annals of the New York Academy of Sciences, 2022, 1514(1):21-33.

DOI

[54]
FUJIWARA-TANI R, MORI S, OGATA R, et al. Claudin-4:a new molecular target for epithelial cancer therapy[J]. International Journal of Molecular Sciences, 2023, 24(6):5494.

DOI

[55]
WANG Z Y, ZHOU L L, ZHENG Y K, et al. Nuclear receptor Nr1d1 links sleep deprivation to intestinal homeostasis via microbiota-derived taurine[J]. Journal of Translational Medicine, 2025, 23(1):1106.

DOI PMID

[56]
WEN C Y, GUO Q P, WANG W L, et al. Taurine alleviates intestinal injury by mediating tight junction barriers in diquat-challenged piglet models[J]. Frontiers in Physiology, 2020, 11:449.

DOI PMID

[57]
MANDAL M, MAMUN M A A, RAKIB A, et al. Modulation of occludin,NF-κB,p-STAT3,and Th17 response by DJ-X-025 decreases inflammation and ameliorates experimental colitis[J]. Biomedicine & Pharmacotherapy, 2025, 185:117939.

DOI

[58]
HE Y J, LI Z, XU T, et al. Polystyrene nanoplastics deteriorate LPS-modulated duodenal permeability and inflammation in mice via ROS drived-NF-κB/NLRP3 pathway[J]. Chemosphere, 2022, 307(Pt 1):135662.

DOI

文章导航

/