研究论文

不同植物蛋白质源部分替代鱼粉对中华鳖生长性能、抗氧化能力和肠道健康的影响

  • 韩絮 , 1, 2, 3 ,
  • 陈伦 4 ,
  • 王自蕊 4 ,
  • 郭冉 2 ,
  • 郭小泽 1, 3 ,
  • 李玲雅 1, 3 ,
  • 王玉柱 1, 3 ,
  • 李思明 1, 3 ,
  • 刘文舒 , 1, 3, * ,
  • 路晶晶 , 1, 2, 3, *
展开
  • 1 江西省农业科学院畜牧兽医研究所, 南昌 330200
  • 2 河北农业大学海洋学院, 秦皇岛 066000
  • 3 畜禽绿色健康养殖江西省重点实验室, 南昌 330200
  • 4 江西农业大学动物科技学院, 南昌 330045
* 刘文舒,研究员,博士生导师,E-mail: ;
路晶晶,研究员,博士生导师,E-mail:

韩 絮(1998—),女,山东青岛人,硕士研究生,从事水产动物营养与饲料研究。E-mail:

Office editor: 田艳明

收稿日期: 2026-01-14

  网络出版日期: 2026-09-12

基金资助

渔农综合种养高质高效技术与轻简化装备(2023YFD2401800)

南丰县龟鳖科技综合体(2024-2026)

江西省名特优产业技术体系(JXARS-15)

Effects of Partial Substitution of Fish Meal with Different Plant Protein Sources on Growth Performance, Antioxidant Capacity and Intestinal Health of Chinese Softshell Turtle (Pelodiscus sinensis)

  • HAN Xu , 1, 2, 3 ,
  • CHEN Lun 4 ,
  • WANG Zirui 4 ,
  • GUO Ran 2 ,
  • GUO Xiaoze 1, 3 ,
  • LI Lingya 1, 3 ,
  • WANG Yuzhu 1, 3 ,
  • LI Siming 1, 3 ,
  • LIU Wenshu , 1, 3, * ,
  • LU Jingjing , 1, 2, 3, *
Expand
  • 1 Institute of Animal Husbandry and Veterinary Medicine, Jiangxi Academy of Agricultural Sciences, Nanchang 330200, China
  • 2 College of Marine Sciences, Hebei Agricultural University, Qinhuangdao 066000, China
  • 3 Jiangxi Key Laboratory of Green and Healthy Livestock and Poultry Farming, Nanchang 330200, China
  • 4 College of Animal Science and Technology, Jiangxi Agricultural University, Nanchang 330045, China
* LIU Wenshu, professor, E-mail: ;
LU Jingjing, professor, E-mail:

Received date: 2026-01-14

  Online published: 2026-09-12

摘要

本试验旨在探究不同植物蛋白质源部分替代鱼粉对中华鳖生长性能、抗氧化能力和肠道健康的影响。选取300只健康的中华鳖(平均体重约500 g),随机分为5组,每组3个重复,每个重复20只。对照组(FM组)饲喂基础饲料,替代组分别采用发酵菜籽粕(FR组)、酶解豆粕(ES组)、螺旋藻粉(SP组)和小球藻粉(CP组)替代基础饲料中5%鱼粉。试验期8周。结果表明:1)与FM组相比,FR组终末体重、增重率和特定生长率显著提高(P<0.05),饲料系数显著降低(P<0.05)。2)与FM组相比,FR组、SP组和CP组肌肉水分含量显著降低(P<0.05),肌肉粗蛋白质含量显著提高(P<0.05);ES组和SP组肌肉粗脂肪含量显著提高(P<0.05)。3)与FM组相比,ES组血清总蛋白和总胆固醇含量显著降低(P<0.05),FR组、SP组和CP组血清碱性磷酸酶活性显著提高(P<0.05),各替代组血清甘油三酯含量以及谷草转氨酶和谷丙转氨酶活性均显著降低(P<0.05)。4)与FM组相比,FR组肝脏总抗氧化能力(T-AOC)显著提高(P<0.05),肝脏丙二醛含量显著降低(P<0.05);ES组肝脏过氧化氢酶和超氧化物歧化酶(SOD)活性显著提高(P<0.05);SP组肝脏T-AOC和SOD活性显著提高(P<0.05);CP组肝脏SOD活性显著降低(P<0.05)。5)与FM组相比,ES组肠道淀粉酶活性显著降低(P<0.05),CP组肠道淀粉酶、脂肪酶和胰蛋白酶活性均显著提高(P<0.05)。6)与FM组相比,FR组和ES组肠道绒毛高度、隐窝深度和肌层厚度显著降低(P<0.05),SP组肠道隐窝深度显著降低(P<0.05),CP组肠道绒毛高度和肌层厚度显著降低(P<0.05)。7)与FM组相比,ES组和CP组肠道菌群Sobs指数和Ace指数显著降低(P<0.05);在门水平上,SP组和CP组弯曲杆菌门(Campylobacterota)相对丰度显著提高(P<0.05),各替代组拟杆菌门(Bacteroidota)相对丰度均显著降低(P<0.05),ES组热脱硫杆菌门(Thermodesulfobacteriota)相对丰度显著提高(P<0.05);在属水平上,ES组劳森菌属(Lawsonia)相对丰度显著提高(P<0.05)。综上所述,发酵菜籽粕综合应用效果较好,是替代中华鳖饲料中鱼粉的优选植物蛋白质源。

本文引用格式

韩絮 , 陈伦 , 王自蕊 , 郭冉 , 郭小泽 , 李玲雅 , 王玉柱 , 李思明 , 刘文舒 , 路晶晶 . 不同植物蛋白质源部分替代鱼粉对中华鳖生长性能、抗氧化能力和肠道健康的影响[J]. 动物营养学报, 2026 , 38(9) : 6925 -6939 . DOI: 10.12418/CJAN2026.553

Abstract

This experiment was conducted to investigate the effects of partial substitution of fish meal with different plant protein sources on growth performance, antioxidant capacity and intestinal health of Chinese softshell turtle (Pelodiscus sinensis). A total of 300 healthy turtles with an average body weight of approximately 500 g were randomly allocated into 5 groups, each with 3 replicates of 20 turtles per replicate. The control group (FM group) was fed a basal diet, while the substitution groups were fed diets in which 5% of the fish meal in the basal diet was replaced by fermented rapeseed meal (FR group), enzymolytic soybean meal (ES group), spirulina powder (SP group) and chlorella powder (CP group), respectively. The trial lasted for 8 weeks. The results showed as follows: 1) compared with the FM group, the final body weight, weight gain rate and specific growth rate in the FR group were significantly increased (P<0.05), and the feed conversion ratio was significantly decreased (P<0.05). 2) Compared with the FM group, the muscle moisture content in the FR, SP and CP groups was significantly decreased (P<0.05), and the muscle crude protein content was significantly increased (P<0.05); the muscle ether extract content in the ES and SP groups was significantly increased (P<0.05). 3) Compared with the FM group, the serum contents of total protein and total cholesterol in the ES group were significantly decreased (P<0.05), the serum alkaline phosphatase activity in the FR, SP and CP groups was significantly increased (P<0.05), and the serum triglyceride content as well as the activities of aspartate aminotransferase and alanine aminotransferase in all substitution groups were significantly decreased (P<0.05). 4) Compared with the FM group, the liver total antioxidant capacity (T-AOC) in the FR group was significantly increased (P<0.05), and the liver malondialdehyde content was significantly decreased (P<0.05); the liver activities of catalase and superoxide dismutase (SOD) in the ES group were significantly increased (P<0.05); the liver T-AOC and SOD activity in the SP group were significantly increased (P<0.05); the liver SOD activity in the CP group was significantly decreased (P<0.05). 5) Compared with the FM group, the intestinal amylase activity in the ES group was significantly decreased (P<0.05), whereas the intestinal activities of amylase, lipase and trypsin in the CP group were significantly increased (P<0.05). 6) Compared with the FM group, the intestinal villus height, crypt depth and muscular layer thickness in the FR and ES groups were significantly decreased (P<0.05), the intestinal crypt depth in the SP group was significantly decreased (P<0.05), and the intestinal villus height and muscular layer thickness in the CP group were significantly decreased (P<0.05). 7) Compared with the FM group, the Sobs index and Ace index of intestinal microbiota in the ES and CP groups were significantly decreased (P<0.05); at the phylum level, the Campylobacterota relative abundance in the SP and CP groups was significantly increased (P<0.05), the Bacteroidota relative abundance in all substitution groups was significantly decreased (P<0.05), and the Thermodesulfobacteriota relative abundance in the ES group was significantly increased (P<0.05); at the genus level, compared with the FM group, the Lawsonia relative abundance in the ES group was significantly increased (P<0.05). In conclusion, the fermented rapeseed meal exhibits the best comprehensive application effects and is a preferred plant protein source for replacing fish meal in the diet for Chinese softshell turtle.

中华鳖(Pelodiscus sinensis)具有较高的营养价值,深受消费者喜爱,市场需求持续增长[1]。然而,随着中华鳖集约化养殖规模的不断扩大,饲料成本,尤其是蛋白质源的成本不断增高,已成为制约其产业发展的关键因素之一[2]。对于传统水产饲料来说,鱼粉作为优质的动物蛋白质源,在生产上一直占据着举足轻重的地位。鱼粉由于蛋白质的氨基酸组成比较均衡、适口性好、消化利用率高,因此能在水生动物生长发育过程中起到促进生长的作用[3]。不过,随着世界范围内鱼粉产量逐渐减少,加上鱼粉价格波动大且供给不稳定等原因,严重影响了水产养殖业的发展,因此寻找一种高性价比、稳定可靠又可持续的替代蛋白质来源成为当前水产饲料营养学领域的研究热点及重点方向。
植物蛋白质原料成本低且来源广,具备替代鱼粉的潜力[4]。从植物蛋白质源在饲料应用中的代表性、结构性和功能潜力进行考量,本研究选取传统加工改良型(发酵菜籽粕和酶解豆粕)和新型功能型(螺旋藻粉和小球藻粉)2类植物蛋白质源,旨在通过系统比较不同结构特性和处理方式的植物蛋白质源对中华鳖生长性能、抗氧化能力和肠道健康的影响,为水产饲料中植物蛋白质的合理选用提供依据。其中,发酵菜籽粕和酶解豆粕通过不同技术将粕类中的抗营养因子有效降解,进而提高饲料中蛋白质的消化利用率及安全性,并产生一些有益代谢产物或小肽。螺旋藻粉和小球藻粉则属于微藻蛋白质,其既是一种蛋白质含量较高的纯天然绿色食品源,又含有大量的多糖、不饱和脂肪酸和维生素等生物活性物质,在供给动物营养物质的同时还能提高机体免疫力,并起到一定的抗氧化作用[5]。然而,植物蛋白质源与鱼粉在氨基酸组成(尤其是赖氨酸和蛋氨酸)、脂肪酸谱以及碳水化合物构成上仍存在较大差异,高比例替代可能会对水产动物生长和健康产生负面影响;尤其是饲料成分的改变可能还会引发机体氧化应激,影响其非特异性免疫功能[6]。此外,肠道是营养物质吸收与免疫相互作用的重要场所,饲料原料的理化特性会影响肠道的形态结构、菌群以及屏障功能,因此肠道健康的变化可能会对整体生产性能产生影响[7]。中华鳖由于对植物蛋白质的消化吸收能力较弱,所以除了发酵豆粕、熟榨棉籽饼、棉籽粉外少有关于植物蛋白质应用的相关报道,且更多的是集中在饲料中的植物蛋白质对中华鳖生长性能和体组成的影响上,对肠道健康状况的影响研究相对不足。因此,本试验旨在研究不同植物蛋白质源部分替代鱼粉对中华鳖生长性能、抗氧化能力和肠道健康的影响,探究其替鱼粉的可能性以及作用机理,以期为配制既经济实用、少污染、低排废,同时又能保障中华鳖健康生长的配合饲料提供依据。

1 材料与方法

1.1 试验饲料

试验设计粗蛋白质含量为42%、粗脂肪含量为8%的中华鳖基础饲料(对照组,FM组),并分别采用发酵菜籽粕(FR组)、酶解豆粕(ES组)、螺旋藻粉(SP组)和小球藻粉(CP组)替代基础饲料中5%鱼粉,共制作5种等氮等脂饲料。所有饲料原料经粉碎机粉碎后过60目网筛,按饲料配方混合均匀,通过膨化机膨化后制作成颗粒状饲料,风干后于-20 ℃条件下保存。饲料组成及营养水平见表1。饲料水分、粗蛋白质、粗脂肪和粗灰分含量参照AOAC(2016)[8]中相应方法测定。
表1 饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis)

项目
Items
组别Groups
FM FR ES SP CP
原料Ingredients
鱼粉Fish meal 50.00 45.00 45.00 45.00 45.00
发酵菜籽粕Fermented rapeseed meal 9.00
酶解豆粕Enzymolytic soybean meal 2.00 2.00 9.00 2.00 2.00
螺旋藻粉Spirulina powder 5.00
小球藻粉Chlorella powder 5.00
虾粉Shrimp meal 5.00 5.00 5.00 5.00 5.00
小麦粉Wheat flour 18.00 18.00 18.00 18.00 18.00
α-淀粉α-starch 9.80 5.60 7.80 9.60 9.70
谷朊粉Wheat gluten powder 2.00 2.00 2.00 2.00 2.00
酵母粉Yeast powder 5.00 5.00 5.00 5.00 5.00
鱼油Fish oil 2.00 2.00 2.00 2.00 2.00
大豆油Soybean oil 1.20 1.40 1.20 1.40 1.30
磷酸二氢钙Ca(H2PO4)2 2.00 2.00 2.00 2.00 2.00
卵磷脂Lecithin 0.50 0.50 0.50 0.50 0.50
维生素预混料Vitamin premix1) 1.00 1.00 1.00 1.00 1.00
矿物质预混料Mineral premix2) 1.00 1.00 1.00 1.00 1.00
胆碱Choline 0.50 0.50 0.50 0.50 0.50
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels3)
水分Moisture 7.50 7.41 7.49 7.42 7.29
粗蛋白质CP 41.74 42.82 41.25 41.27 42.50
粗脂肪EE 6.42 6.65 6.77 6.09 6.58
粗灰分Ash 11.55 11.77 11.45 11.88 11.46

1)维生素预混料为每千克饲料提供 The vitamin premix provided the following per kilogram of diets:VA 21 667 IU,VD 4 800 IU,VE 200 IU,VK3 25 mg,VB1 6 mg,VB2 5 mg,VB6 7.5 mg,VB12 0.03 mg,烟酰胺 nicotinamide 50mg,抗坏血酸 ascorbic acid 400 mg,泛酸钙 calcium pantothenate 25 mg,叶酸 folic acid 5 mg,生物素 biotin 1 mg,肌醇 inositol 100 mg。

3)营养水平为实测值。Nutrient levels were measured values.

2)矿物质预混料为每千克饲料提供 The mineral premix provided the following per kilogram of diets:MnSO4·H2O 60 mg,KI 0.1 mg,CoCl2 (1%) 3 mg,CuSO4·5H2O 15 mg,FeSO4·H2O 260 mg,ZnSO4·H2O 180 mg,Na2SeO3 (1%) 1.5 mg。

1.2 试验设计和饲养管理

动物试验经江西省农业科学院畜牧兽医研究所实验动物伦理委员会审核批准(批准编号:2024-JXAAS-XM-20);参与试验人员严格遵循伦理道德规范,并按照相应规章制度开展相关工作。试验用中华鳖购自南丰县恒辉龟鳖养殖专业合作社,养殖试验在江西省抚州市南丰县太和镇稻鳖养殖基地开展。6亩试验稻田集中连片,地面开阔,环沟宽10 m、深1 m,坡比1∶2,矩形鳖坑长60 m、宽20 m、深1 m,环沟和鳖坑面积占稻田面积的10%以内。鳖坑和环沟被金属丝网分割成15个独立区域(长×宽×深=20 m×4 m×1 m),并安装防逃设施。
试验选用300只(平均体重约500 g)体质健壮、无伤病的中华鳖,随机分为5组,每组3个重复,每个重复20只,放置在相应的分割鳖坑内。5组中华鳖分别饲喂5种饲料,采用饱食投喂,以40 min后水面上不见残饵为宜,每日投喂2次(06:30和17:30各1次)。试验期间每日巡塘2次,观察中华鳖的生长状态以及场地的防逃设施是否完善,记录养殖期间投饵情况以及中华鳖的活动和死亡情况等。试验期间水体温度为(32±5) ℃,试验期8周。

1.3 样品采集

养殖试验结束后中华鳖禁食24 h,以减少消化道内容物对样品指标的影响。随后采用MS-222(浓度为100 mg/L)对中华鳖进行浸浴麻醉,待其完全进入麻醉状态(对外界刺激无反应)后取出,用洁净毛巾轻轻擦干体表水分。统计每组每个重复中所有中华鳖的数量并称重,每个重复随机选取4只健康、体形均匀的个体,解剖后完整取出肝脏,用滤纸吸干表面液体,准确称重,并按公式计算肝体比(HSI)。采用活体颈静脉穿刺法采集全血约3 mL于5 mL离心管(不含抗凝剂)中,血液样品于4 ℃静置过夜后,以1 006×g离心15 min分离血清。分离上层血清,分装于无菌离心管中,于-80 ℃保存备用,用于后续血清生化指标测定。解剖采血后的中华鳖,取约0.5 g肝脏右叶样品,立即置于液氮中速冻,随后转移至-80 ℃冰箱保存,用于肝脏抗氧化指标的测定。取前肠段约2 cm立即置于液氮中速冻,随后转移至-80 ℃冰箱保存,用于肠道消化酶活性的测定;取中肠段约1 cm,用预冷的生理盐水轻轻冲洗内容物后,置于4%多聚甲醛溶液中固定(4 ℃,24 h),用于后续石蜡切片制作及肠道组织形态学观察;另取相邻肠段约0.5 g,液氮速冻后于-80 ℃保存,用于肠道菌群分析。取右前腿部肌肉约20 g,剔除可见脂肪和结缔组织后,分装冻存于-80 ℃,用于常规营养成分含量测定。

1.4 测定指标及方法

1.4.1 生长性能

生长性能指标计算公式如下:
成活率(SR,%)=100×Nt/N0;
增重率(WGR,%)=100×[(Wt-W0)/W0];
特定生长率(SGR,%/d)=100×[lnWt-lnW0]/t;
摄食率(FR,%)=100×F/[t×(Wt+W0)/2];
饲料系数(FCR)=F/(Wt-W0);
HSI(%)=100×WL/Wt
式中:Nt为中华鳖终末数量;N0为中华鳖初始数量;Wt为中华鳖终末体重(g);W0为中华鳖初始体重(g);t为试验天数(d);F为饲料总摄食量(g);WL为肝脏重(g)。

1.4.2 肌肉常规营养成分含量

肌肉水分含量参照GB 5009.3—2016采用105 ℃常压干燥法测定,粗蛋白质含量参照GB 5009.5—2016采用凯氏定氮法测定,粗脂肪含量参照GB 5009.6—2016采用索氏提取法测定,粗灰分含量参照GB 5009.4—2016采用马弗炉高温煅烧法测定。

1.4.3 血清生化指标、肝脏抗氧化指标和肠道消化酶活性

血清总蛋白(TP)、白蛋白(ALB)、总胆固醇(TC)、甘油三酯(TG)、酸性磷酸酶(ACP)、碱性磷酸酶(AKP)、谷草转氨酶(AST)和谷丙转氨酶(ALT)含量或活性,肝脏总抗氧化能力(T-AOC)、过氧化氢酶(CAT)和超氧化物歧化酶(SOD)活性以及丙二醛(MDA)含量,肠道淀粉酶、脂肪酶和胰蛋白酶活性均采用南京建成生物工程研究所生产的商业试剂盒按照说明书进行测定。

1.4.4 肠道组织形态

将4%多聚甲醛固定的肠道组织经过乙醇脱水处理后,用石蜡包埋制作组织切片;随后,将组织切片在37 ℃的恒温箱中干燥,然后用苏木精-伊红(HE)染色;最后,采用显微镜(DP72,OLYMPUS)进行切片观察和图像采集,并测定绒毛高度、隐窝深度和肌层厚度。

1.4.5 肠道菌群

肠道菌群分析委托广州基迪奥生物科技有限公司进行。采用通用引物341F(5'-CCTACGGGNGGCWGCAG-3')和806R(5'-GGACTACHVGGGTATCTAAT-3')扩增提取16S rDNA的V3~V4区域;然后PCR扩增产物切胶回收,采用QuantiFluorTM荧光计进行定量;将纯化的扩增产物进行等量混合,连接测序接头,构建测序文库,并在Illumina PE250上机测序。根据分析流程,依次进行物种注释、群落组成分析、α多样性分析以及β多样性分析等。

1.5 数据统计分析

试验数据采用SPSS 26.0软件进行统计分析,在满足正态分布和方差齐性的前提下,采用单因素方差分析(one-way ANOVA)进行组间差异性检验,若结果显著(P<0.05),则进一步采用Tukey法进行多重比较;结果数据采用“平均值±标准差(mean±SD)”形式表示,P<0.05表示差异显著。

2 结果与分析

2.1 不同植物蛋白质源部分替代鱼粉对中华鳖生长性能的影响

表2可知,与FM组相比,FR组中华鳖终末体重、WGR和SGR显著提高(P<0.05),FCR显著降低(P<0.05);其他替代组生长性能指标无显著差异(P>0.05)。各组间HSI无显著差异(P>0.05)。试验期间,各组中华鳖均未出现死亡情况。
表2 不同植物蛋白质源部分替代鱼粉对中华鳖生长性能的影响

Table 2 Effects of partial substitution of fish meal with different plant protein sources on growth performance of Chinese softshell turtle (Pelodiscus sinensis)

项目
Items
组别Groups P
P-value
FM FR ES SP CP
初始体重IBW/g 542.33±4.91 542.00±4.16 547.67±6.69 545.67±3.84 533.00±3.00 0.082
终末体重FBW/g 737.50±7.22b 845.36±7.21a 744.81±5.14b 746.46±5.64b 750.45±4.20b <0.001
增重率WGR/% 35.19±0.39b 55.97±0.38a 36.02±1.21b 36.80±0.11b 35.72±1.22b <0.001
特定生长率SGR/(%/d) 0.68±0.01b 0.99±0.01a 0.68±0.02b 0.70±0.00b 0.68±0.02b <0.001
摄食率FR/% 1.19±0.04ab 1.22±0.01a 1.13±0.03b 1.15±0.01ab 1.08±0.02b 0.003
饲料系数FCR 1.69±0.02a 1.26±0.01b 1.67±0.08a 1.66±0.01a 1.61±0.07a <0.001
肝体比HSI/% 3.69±0.19 3.19±0.28 3.09±0.26 3.38±0.23 3.53±0.38 0.156
成活率SR/% 100.00 100.00 100.00 100.00 100.00

同行数据肩标不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 不同植物蛋白质源部分替代鱼粉对中华鳖肌肉常规营养成分含量的影响

表3可知,与FM组相比,FR组、SP组和CP组中华鳖肌肉水分含量显著降低(P<0.05),肌肉粗蛋白质含量显著提高(P<0.05);ES组和SP组肌肉粗脂肪含量显著提高(P<0.05)。各组间肌肉粗灰分含量无显著差异(P>0.05)。
表3 不同植物蛋白质源部分替代鱼粉对中华鳖肌肉常规营养成分含量的影响

Table 3 Effects of partial substitution of fish meal with different plant protein sources on conventional nutrient contents in muscle of Chinese softshell turtle (Pelodiscus sinensis)

项目
Items
组别Groups P
P-value
FM FR ES SP CP
水分Moisture 77.34±0.22a 76.08±0.18b 76.34±0.21ab 75.07±0.60b 76.00±0.48b <0.001
粗蛋白质CP 19.51±0.25b 20.79±0.32a 19.55±0.13b 21.16±0.25a 20.80±0.42a <0.001
粗脂肪EE 0.26±0.01b 0.26±0.01b 0.31±0.02a 0.29±0.01a 0.27±0.01ab <0.001
粗灰分Ash 1.03±0.01 0.99±0.06 1.01±0.05 0.99±0.03 1.00±0.05 0.625

2.3 不同植物蛋白质源部分替代鱼粉对中华鳖血清生化指标的影响

表4可知,与FM组相比,ES组中华鳖血清TP和TC含量显著降低(P<0.05);FR组、SP组和CP组血清AKP活性显著提高(P<0.05);各替代组血清TG含量以及AST和ALT活性均显著降低(P<0.05)。各组间血清ACP活性无显著差异(P>0.05)。
表4 不同植物蛋白质源部分替代鱼粉对中华鳖血清生化指标的影响

Table 4 Effects of partial substitution of fish meal with different plant protein sources on serum biochemical indices of Chinese softshell turtle (Pelodiscus sinensis)

项目
Items
组别Groups P
P-value
FM FR ES SP CP
总蛋白TP/(g/L) 17.79±0.34a 16.71±0.79ab 15.84±0.54b 17.78±0.41a 16.04±0.79ab 0.012
白蛋白ALB/(g/L) 13.92±1.28ab 15.52±1.23a 12.10±1.88b 14.10±1.38ab 15.01±0.86a 0.028
总胆固醇TC/(mmol/L) 5.63±0.05a 6.24±0.93a 3.79±0.56b 5.32±0.04a 5.22±0.07a <0.001
甘油三酯TG/(mmol/L) 4.44±0.40a 1.59±0.07bc 1.14±0.17c 1.89±0.16b 1.75±0.21bc <0.001
酸性磷酸酶
ACP/(U/dL)
5.48±0.06 5.52±0.43 5.17±0.12 5.71±0.14 5.45±0.13 0.215
碱性磷酸酶
AKP/(金氏单位/dL)
16.29±1.41c 25.55±2.17a 20.81±1.23bc 26.05±1.23a 23.74±0.28ab <0.001
谷草转氨酶AST/(U/L) 7.45±1.18a 6.00±0.61b 4.99±0.75b 5.71±0.29b 5.31±0.78b <0.001
谷丙转氨酶ALT/(U/L) 1.97±0.33a 0.69±0.09b 0.99±0.07b 0.68±0.07b 0.95±0.15b <0.001

2.4 不同植物蛋白质源部分替代鱼粉对中华鳖肝脏抗氧化指标的影响

表5可知,与FM组相比,FR组中华鳖肝脏T-AOC显著提高(P<0.05),肝脏MDA含量显著降低(P<0.05);ES组肝脏CAT和SOD活性显著提高(P<0.05);SP组肝脏T-AOC和SOD活性显著提高(P<0.05);CP组肝脏SOD活性显著降低(P<0.05)。
表5 不同植物蛋白质源部分替代鱼粉对中华鳖肝脏抗氧化指标的影响

Table 5 Effects of partial substitution of fish meal with different plant protein sources on liver antioxidant indices of Chinese softshell turtle (Pelodiscus sinensis)

项目
Items
组别Groups P
P-value
FM FR ES SP CP
总抗氧化能力
T-AOC/(U/g prot)
1.28±0.22b 2.03±0.22a 0.98±0.12b 2.06±0.20a 1.21±0.14b <0.001
过氧化氢酶
CAT/(U/g prot)
817.58±57.99b 844.08±85.96ab 1 031.20±26.54a 802.88±111.10b 998.36±72.38ab <0.001
超氧化物歧化酶
SOD/(U/mg prot)
58.64±0.24b 63.49±1.34ab 66.52±2.53a 67.41±1.48a 51.84±2.71c <0.001
丙二醛
MDA/(nmol/mg prot)
2.98±0.53a 1.64±0.03b 2.98±0.32a 2.57±0.42a 2.74±0.22a <0.001

2.5 不同植物蛋白质源部分替代鱼粉对中华鳖肠道消化酶活性的影响

表6可知,与FM组相比,ES组中华鳖肠道淀粉酶活性显著降低(P<0.05);CP组肠道淀粉酶、脂肪酶和胰蛋白酶活性均显著提高(P<0.05);FR组和SP组肠道各消化酶活性无显著差异(P>0.05)。
表6 不同植物蛋白质源部分替代鱼粉对中华鳖肠道消化酶活性的影响

Table 6 Effects of partial substitution of fish meal with different plant protein sources on intestinal digestive enzyme activity of Chinese softshell turtle (Pelodiscus sinensis) U/mg prot

项目
Items
组别Groups P
P-value
FM FR ES SP CP
淀粉酶Amylase 0.11±0.01b 0.12±0.01b 0.04±0.01c 0.11±0.01b 0.19±0.04a <0.001
脂肪酶Lipase 17.12±1.32bc 11.47±0.57c 22.06±2.03b 19.47±3.37bc 30.71±3.72a <0.001
胰蛋白酶Trypsin 585.35±16.42b 595.41±78.37b 624.62±61.07b 596.98±43.32b 1 265.50±198.70a <0.001

2.6 不同植物蛋白质源部分替代鱼粉对中华鳖肠道组织形态的影响

图1表7所示,与FM组相比,FR组和ES组中华鳖肠道绒毛高度、隐窝深度和肌层厚度显著降低(P<0.05);SP组肠道隐窝深度显著降低(P<0.05);CP组肠道绒毛高度和肌层厚度显著降低(P<0.05)。
图1 中华鳖肠道组织切片

VH:绒毛高度 villus height;CD:隐窝深度 crypt depth;MT:肌层厚度 muscular layer thickness。

Fig.1 Sections of intestinal tissues of Chinese softshell turtle (Pelodiscus sinensis) (200×)

表7 不同植物蛋白质源部分替代鱼粉对中华鳖肠道组织形态的影响

Table 7 Effects of partial substitution of fish meal with different plant protein sources on intestinal tissue morphology of Chinese softshell turtle (Pelodiscus sinensis)

项目
Items
组别Groups P
P-value
FM FR ES SP CP
绒毛高度Villus height 856.82±33.25a 579.49±14.75b 643.05±23.93b 819.06±27.47a 668.66±42.55b <0.001
隐窝深度Crypt depth 76.91±1.01a 61.55±1.36c 69.49±4.01b 68.97±1.98b 74.31±2.70ab <0.001
肌层厚度
Muscular layer thickness
374.41±6.80a 350.45±8.65b 322.45±7.77c 362.57±2.45ab 335.00±9.08c <0.001

2.7 不同植物蛋白质源部分替代鱼粉对中华鳖肠道菌群的影响

2.7.1 α多样性分析

表8可知,与FM组相比,ES组和CP组中华鳖肠道菌群Sobs指数和Ace指数显著降低(P<0.05);FR组和SP组Sobs指数和Ace指数无显著差异(P>0.05);各替代组Chao1指数无显著差异(P>0.05)。各组间Shannon指数、Simpson指数和Goods覆盖度无显著差异(P>0.05)。
表8 不同植物蛋白质源部分替代鱼粉对中华鳖肠道菌群α多样性的影响

Table 8 Effects of partial substitution of fish meal with different plant protein sources on α diversity of intestinal microbiota of Chinese softshell turtle (Pelodiscus sinensis)

项目
Items
组别Groups P
P-value
FM FR ES SP CP
Shannon指数
Shannon index
4.58±2.01 3.55±1.67 3.79±1.72 3.87±0.75 2.28±1.82 0.105
Simpson指数
Simpson index
0.81±0.19 0.74±0.20 0.85±0.18 0.86±0.08 0.65±0.17 0.098
Chao1指数Chao1 index 485.40±83.63ab 460.64±40.03ab 359.71±6.60b 500.38±40.60a 441.95±103.79ab 0.021
Sobs指数Sobs index 452.00±95.41a 397.00±63.49abc 307.67±15.53bc 423.67±55.42ab 302.33±48.81c 0.006
Ace指数Ace index 489.99±80.31a 460.32±31.77ab 377.98±14.73bc 484.24±47.61a 359.05±49.08c 0.002
Goods覆盖度
Goods coverage
0.99±0.00 0.99±0.00 0.99±0.00 0.99±0.00 0.99±0.00 0.987

2.7.2 β多样性分析

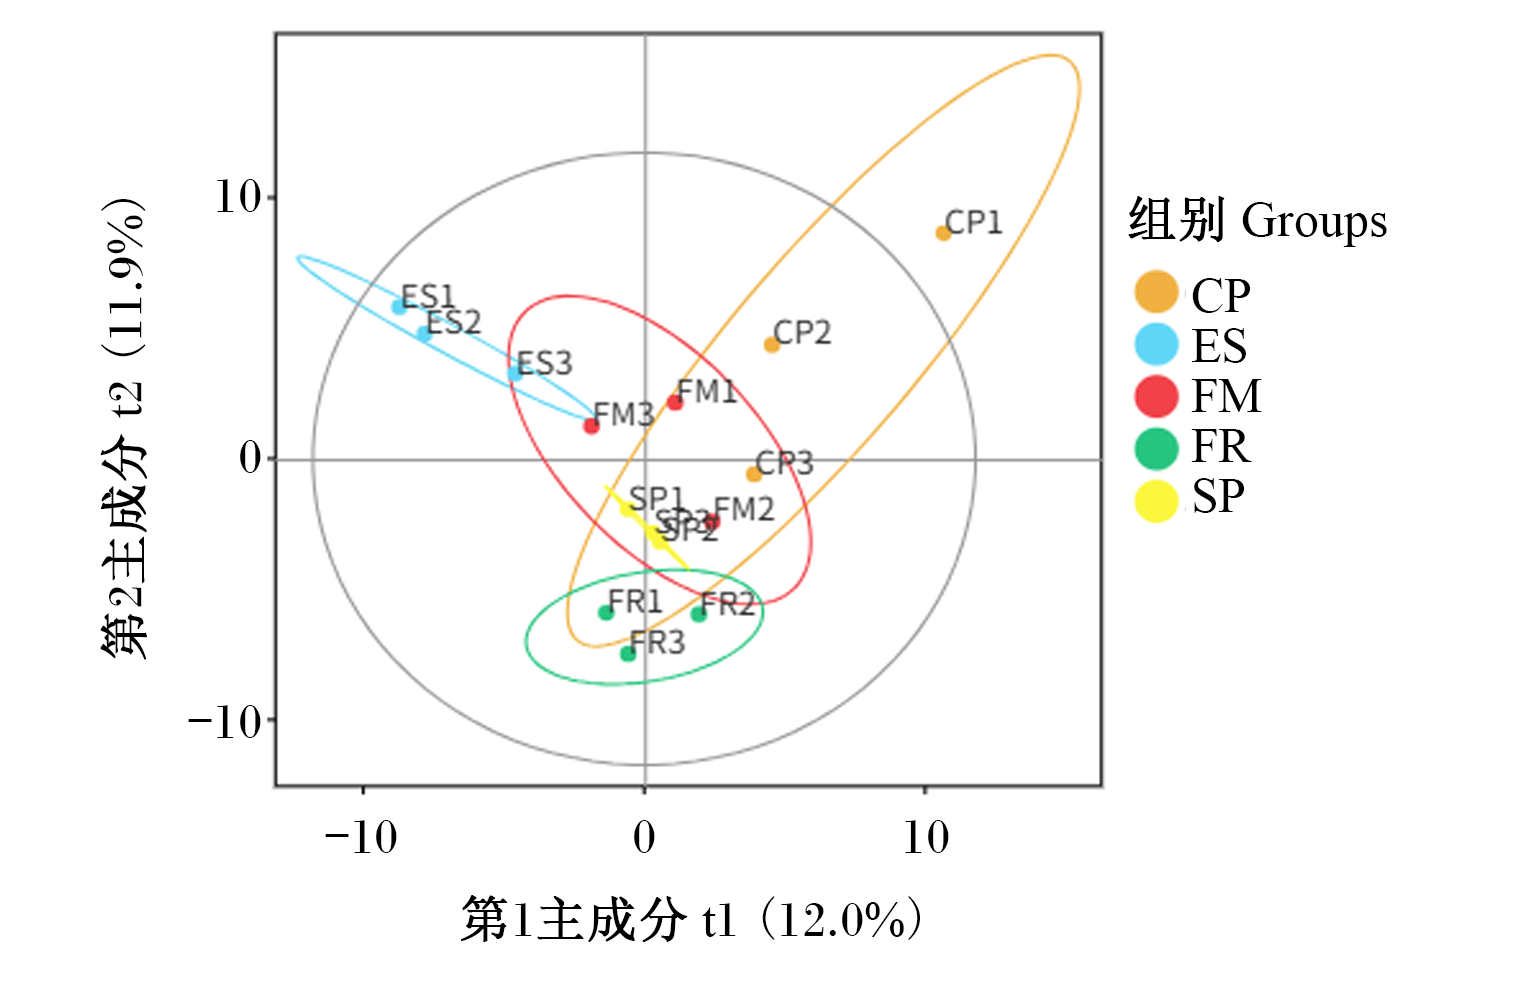
基于偏最小二乘法判别分析(PLS-DA)模型对中华鳖肠道菌群结构进行分析,结果如图2所示。图中横轴和纵轴分别代表第1主成分(t1)和第2主成分(t2),其解释率分别为12.0%和11.9%,表明模型能够有效区分不同饲料处理对肠道菌群的影响。其中,FM组样本点分布相对集中;FR组样本点与FM组存在部分重叠,同时展现出向特定方向的聚集趋势;ES组样本点明显偏离FM组和FR组,且组内变异较小;SP组样本点分布较为分散,部分样本点与CP组相近;CP组样本点分布范围最广,组内离散度大,且与其他各组均存在明显分离。
图2 中华鳖肠道菌群偏最小二乘法判别分析

Fig.2 PLS-DA of intestinal microbiota of Chinese softshell turtle (Pelodiscus sinensis)

2.7.3 物种组成分析

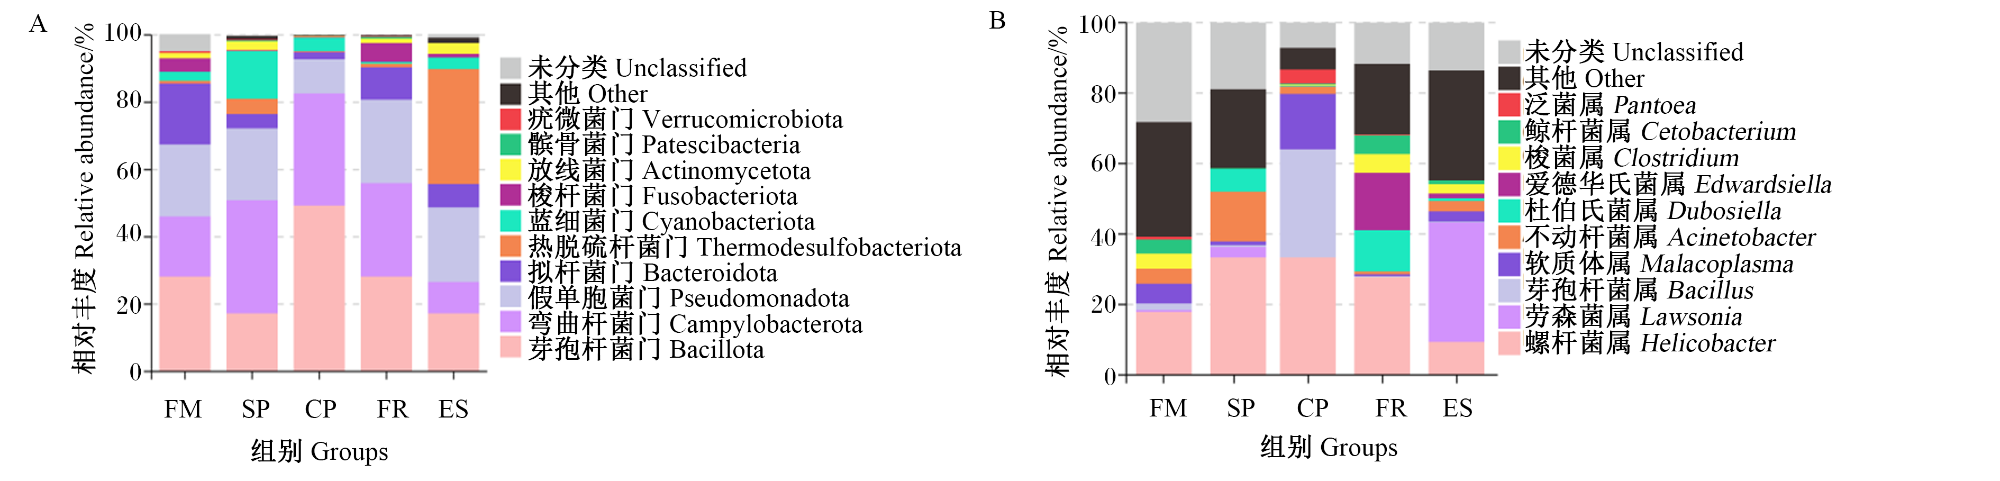
图3所示,在门水平上,5组中华鳖肠道菌群中排名前4的优势菌门分别为芽孢杆菌门(Bacillota)、弯曲杆菌门(Campylobacterota)、假单胞菌门(Pseudomonadota)和拟杆菌门(Bacteroidota);其中,在FM组、FR组和CP组中,相对丰度最高的优势菌门均为芽孢杆菌门。在属水平上,5组肠道菌群中排名前4的优势菌属为螺杆菌属(Helicobacter)、劳森菌属(Lawsonia)、芽孢杆菌属(Bacillus)和软质体属(Malacoplasma)。
图3 中华鳖肠道菌群在门(A)和属(B)水平上的组成

Fig.3 Composition of intestinal microbiota at phylum (A) and genus (B) levels of Chinese softshell turtle (Pelodiscus sinensis)

表9可知,在门水平上,与FM组相比,SP组和CP组中华鳖肠道菌群中弯曲杆菌门相对丰度显著提高(P<0.05);各替代组拟杆菌门相对丰度均显著降低(P<0.05);ES组热脱硫杆菌门(Thermodesulfobacteriota)相对丰度显著提高(P<0.05)。在属水平上,与FM组相比,ES组劳森菌属相对丰度显著提高(P<0.05)。
表9 不同植物蛋白质源部分替代鱼粉对中华鳖肠道菌群相对丰度的影响

Table 9 Effects of partial substitution of fish meal with different plant protein sources on relative abundance of intestinal microbiota of Chinese softshell turtle (Pelodiscus sinensis)

项目
Items
组别Groups P
P-value
FM FR ES SP CP
门水平Phylum level
芽孢杆菌门Bacillota 31.71±12.15 13.89±8.93 21.64±7.27 10.53±5.52 32.82±17.94 0.065
弯曲杆菌门
Campylobacterota
2.92±2.48b 8.40±5.23b 12.03±6.38b 44.47±17.28a 44.40±28.63a <0.001
假单胞菌门
Pseudomonadota
27.92±11.07 7.62±4.21 28.87±11.68 25.72±6.51 13.36±10.56 0.058
拟杆菌门Bacteroidota 24.24±12.93a 2.49±1.51b 5.12±3.30b 2.67±1.57b 0.57±0.33b <0.001
热脱硫杆菌门
Thermodesulfobacteriota
0.92±0.39b 0.28±0.14b 45.49±21.39a 6.18±2.72b 0.14±0.02b <0.001
属水平Genus
螺杆菌属Helicobacter 19.57±3.17 29.30±4.07 10.36±8.87 39.82±13.72 36.75±14.64 0.072
劳森菌属Lawsonia 0.43±0.63b 0.13±0.06b 36.27±4.27a 2.63±5.25b 0.05±0.02b <0.001
芽孢杆菌属Bacillus 1.90±1.99 0.12±0.14 0.11±0.14 0.52±0.78 30.60±20.48 0.171
软质体属Malacoplasma 2.61±2.11 1.18±1.31 3.82±2.91 14.95±10.75 2.34±2.38 0.053
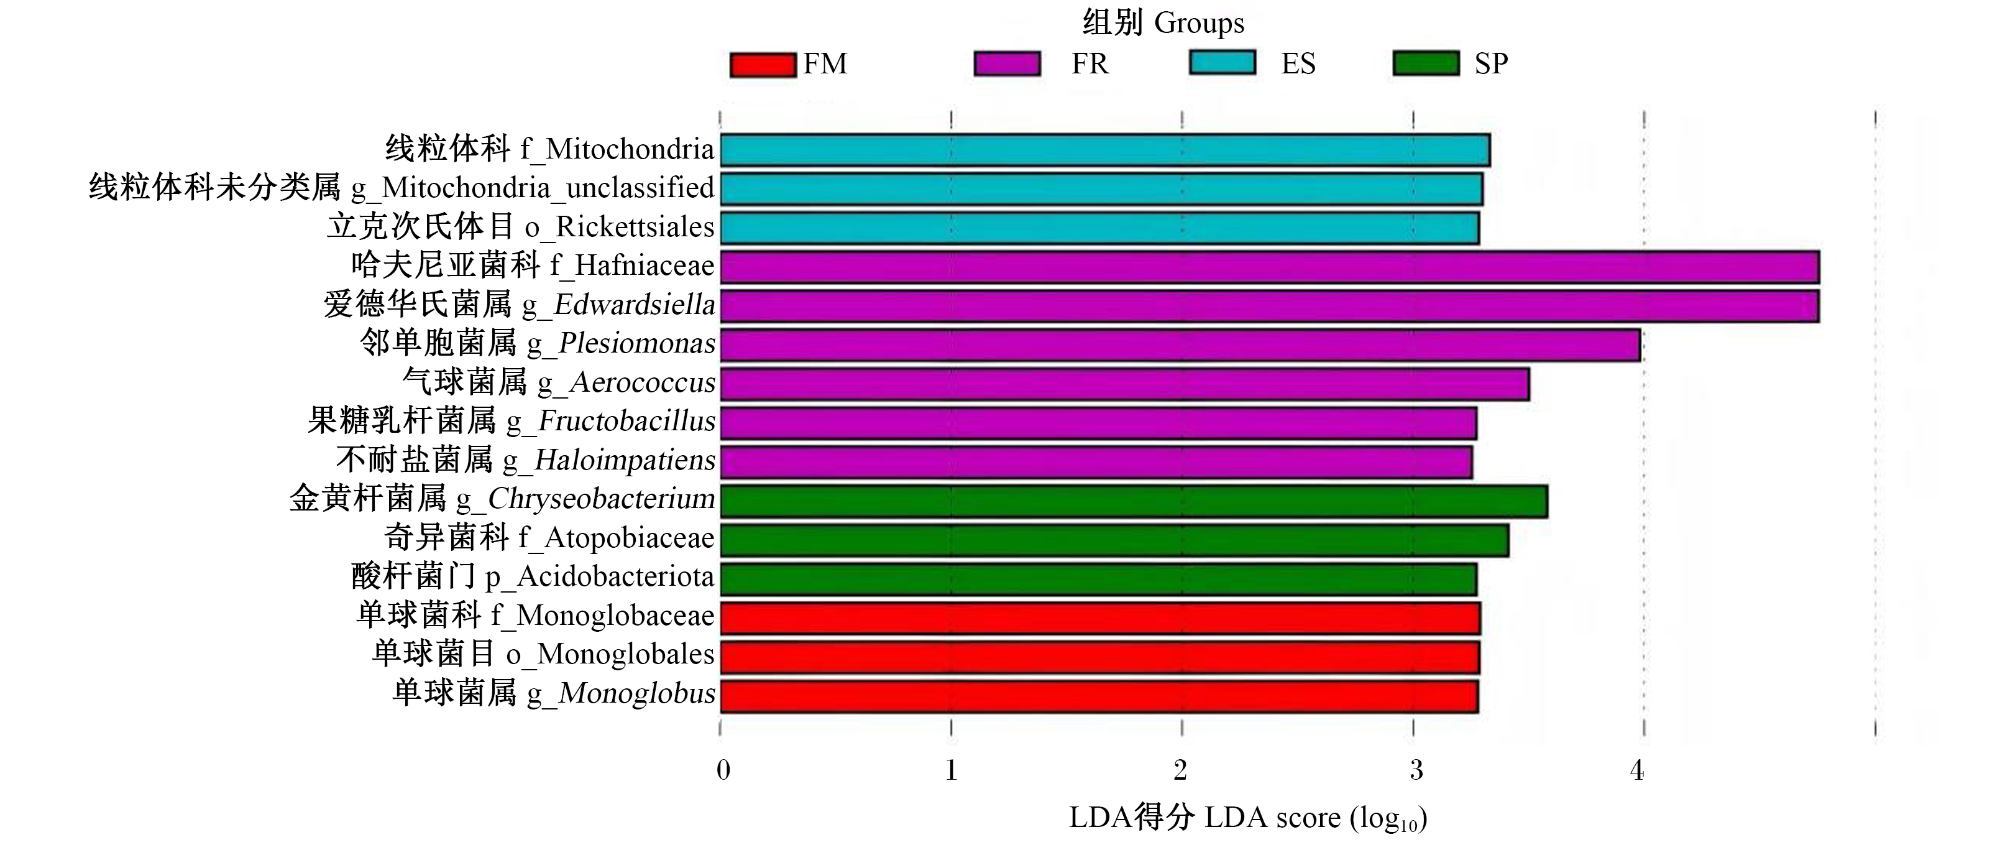
进一步对中华鳖肠道菌群进行线性判别分析效应大小(LEfSe)分析,并以线性判别分析(LDA)得分>3和P<0.05为判断标准,筛选各组标志微生物,结果如图4所示。其中,FM组显著富集的主要为单球菌属(Monoglobus);FR组显著富集的主要为哈夫尼亚菌科(Hafniacea)和爱德华氏菌属(Edwardsiella);SP组显著富集的主要为金黄杆菌属(Chryseobacterium)、奇异菌科(Atopobiaceae)和酸杆菌门(Acidobacteriota);ES组显著富集的主要为线粒体科(Mitochondria)、线粒体科未分类属(Mitochondria_unclassified)和立克次氏体目(Rickettsiales)。
图4 中华鳖肠道菌群LEfSe分析

Fig.4 LEfSe analysis of intestinal microbiota of Chinese softshell turtle (Pelodiscus sinensis)

3 讨论

3.1 不同植物蛋白质源部分替代鱼粉对中华鳖生长性能和肌肉营养成分含量的影响

本试验评估了发酵菜籽粕、酶解豆粕、螺旋藻粉和小球藻粉4种植物蛋白质源对中华鳖生长性能的影响,结果发现在促进生长和提高饲料效率方面效果最为突出的是发酵菜籽粕。这可能与菜籽粕经发酵后能有效降解硫苷、植酸和单宁等抗营养因子,并且产生小分子肽、游离氨基酸和有机酸等有关[9]。虽然目前已有研究证实,在水生动物中,发酵菜籽粕用于部分替代豆粕是完全可行的[10-11],但关于发酵菜籽粕替代鱼粉对水生动物的研究相对较少。Dossou等[12]研究发现,发酵菜籽粕替代56.25%鱼粉不会对红鲷幼鱼生长和营养利用产生不良影响。陈晨[13]在凡纳滨对虾上的研究也显示,发酵菜籽粕异硫氰酸酯含量较低,对促进对虾生长发育和蛋白质吸收更有利。同时,本研究发现,与FM组相比,ES组、SP组和CP组中华鳖FR和FCR均无显著差异,这表明通过酶解豆粕和藻粉部分替代鱼粉或可实现中华鳖养殖的“降本增效”;不过FR从数值上看有所降低也提示如果未来想通过替代更高比例的鱼粉来降低成本,适口性问题或许还需要进一步解决。此外,在肌肉营养成分含量方面,FR组、SP组和CP组中华鳖肌肉粗蛋白质含量较FM组显著提高;相应地,其肌肉水分含量显著降低也很好地支持了这一点,即蛋白质合成和代谢过程消耗水分,高蛋白质沉积效率的植物蛋白质源使肌肉水分含量减少[14]。而ES组和SP组中华鳖肌肉粗脂肪含量较高,提示这2种蛋白质源可能改变了中华鳖的能量代谢流向,促进了能量向肌肉脂肪的沉积,并且这种改变很可能与它们独特的营养成分(如小肽、特定脂肪酸)和生理调节功能有关。

3.2 不同植物蛋白质源部分替代鱼粉对中华鳖血清生化指标和肝脏抗氧化指标的影响

本研究中,与FM组相比,ES组中华鳖血清TP、TC和TG含量显著降低,SP组和CP组血清TG含量显著降低,加之ES组和SP组肌肉粗脂肪含量显著提高,表明植物蛋白质源或可对中华鳖的脂质代谢途径实施整体性调控干预。各替代组血清TG含量普遍降低,而ES组和SP组肌肉粗脂肪含量提高,这其实反映了一种更健康的能量分配和代谢状态。简单来说,脂肪优先沉积于肌肉中,有助于改善肉质,而不是在血液和肝脏内形成过度的蓄积[15-16]。这种代谢重塑亦与植物蛋白质源自身较低的胆固醇含量和独特的脂肪酸组成存在关联,这重构了中华鳖摄入的脂质种类及水平,进而对其内源性脂质代谢网络产生调控效应[17-18]。此外,在所有植物蛋白质替代组中,中华鳖血清AST和ALT活性较FM组均显著降低,这是个积极的信号。这2个指标通常作为评价肝脏损伤的关键敏感指[19],两者活性的同步性下降,证实了本研究采用植物蛋白质源替代部分鱼粉的策略,不仅未对中华鳖肝脏造成器质性损伤,还可能对其肝脏功能发挥了一定程度的保护作用。同时,FR组、SP组和CP组血清AKP活性较FM组显著提高,由于AKP活性通常与机体免疫应答的增强态势以及细胞代谢的活跃程度呈正相关[20],这或可暗示此类植物蛋白质源对中华鳖产生了正向的刺激作用。
本研究以指示机体氧化损伤程度的MDA含量[21]以及抗氧化系统关键防御指标CAT、SOD活性和T-AOC[22]为分析靶标,对机体的氧化还原状态进行了评估,结果表明,与FM相比,FR组中华鳖肝脏T-AOC显著提高,肝脏MDA含量显著降低。这表明发酵菜籽粕具有强化机体整体抗氧化防御能力的功效,同时又能缓解脂质过氧化所诱发的细胞损伤。同时,ES组和SP组的抗氧化效应存在特异性,前者定向提高CAT和SOD活性,后者则靶向提升T-AOC和SOD活性。该种差异化的响应模式表明,酶解豆粕和螺旋藻粉可通过激活抗氧化系统内的不同途径,从而提升机体的抗氧化能力。

3.3 不同植物蛋白质源部分替代鱼粉对中华鳖肠道健康的影响

本研究表明,用不同的植物蛋白质源替代鱼粉后,中华鳖的肠道健康会受到多方面的影响,主要体现在肠道消化酶活性、形态结构以及菌群组成这3个相互关联的层面。这些变化共同决定了不同蛋白质源的适用性。肠道消化酶活性的变化首先反映肠道消化功能的不同适应方式。与FM组相比,CP组中华鳖肠道淀粉酶、脂肪酶和胰蛋白酶活性均显著提高,这可能是一种代偿性的生理反应。小球藻粉中难分解的细胞壁成分或某些特殊营养物质能够刺激肠道腺体过度分泌消化酶,从而试图提高分解效率[23]。但问题是,这种“高能耗”的代偿并没有带来更好的促生长效果,说明消化效率可能并不是限制生长的唯一因素。与此同时,ES组肠道淀粉酶活性较FM组显著降低,这一结果与之前在珍珠龙胆石斑鱼幼鱼的研究中酶解豆粕替代鱼粉后降低消化酶活性的结果[24]类似,这可能与酶解豆粕中残留的抗营养因子干扰了胰腺分泌或肠道功能有关。此外,值得关注的是,所有植物蛋白质替代组中华鳖都出现了不同程度的肠道结构退化,具体表现为绒毛高度、隐窝深度和肌层厚度的同步降低。这种结构上的改变通常是肠道屏障受损、吸收面积减小的典型标志[25],但不能仅从肠道组织形态的单一维度来评估整体生长性能,比如发酵菜籽粕依然表现出了促进生长的效果。这也提示,肠道结构退化到底是适应性重塑还是病理性损伤应该重新被审视。发酵菜籽粕在引起肠道发生轻度适应性形态改变的同时,通过提供更优的营养基质,重塑有益的肠道微生态,增强肠道屏障功能,综合产生了强大的“功能代偿”效应。最终,这些正面效应的总和大于结构适应性改变可能带来的负面影响,从而在整体上表现为对生长性能的促进。不过,这需要后续开展更深入的研究来进一步证实。
中华鳖肠道菌群α多样性分析结果显示,ES组和SP组分别获得最低和最高的Chao1指数,说明螺旋藻粉比酶解豆粕更容易提高肠道菌群的丰富度。而ES组和CP组Sobs指数和Ace指数均显著低于FM组,这表明酶解豆粕和小球藻粉这2种植物蛋白质源的添加均在一定程度上降低了中华鳖肠道菌群的物种丰富度。酶解豆粕和小球藻粉的蛋白质结构、纤维组成及抗营养因子(如小球藻的坚韧细胞壁、豆粕中的部分残留抗原)与鱼粉存在本质差异,这种差异可能改变肠道内容物的物理化学环境(如pH、黏液分泌、消化产物构成),从而形成一种不利于部分土著微生物生长、而利于少数适应菌种增殖的生态位,有可能导致可检测到的操作分类单元(OTU)数量减少[23]。有趣的是,尽管ES组和CP组在肠道菌群丰富度指数上变化显著,但各组间Shannon指数和Simpson指数无显著差异,这表明不同植物蛋白质源替代方案虽影响了中华鳖肠道菌群物种数量,但并没有改变它们的分布均匀度和整体多样性结构。这个结果提示,在本试验条件下,用植物蛋白质替代鱼粉,并没有对中华鳖的肠道菌群稳定性造成破坏,菌群整体还是保持了比较好的适应性和平衡力。β多样性分析从整体结构角度证实,不同植物蛋白质源对中华鳖肠道菌群产生了特异性重塑。其中,发酵菜籽粕对肠道菌群结构的改变最为温和,与FM组最为接近,表现出良好的生态相容性,这是其作为鱼粉替代物具备良好综合应用前景的有力佐证。酶解豆粕则引导肠道菌群向一个独特但相对稳定的新状态转变,提示酶解豆粕可能通过其特定的蛋白质组成或酶解产物(如小肽、氨基酸),显著改变中华鳖肠道微生态环境,定向选择与该底物相适应的微生物类群。而2种微藻蛋白质,尤其是小球藻粉,在改变肠道菌群结构的同时,可能引入了较高的个体变异和生态不确定性。这可能与小球藻细胞壁难以降解、营养成分释放不均一,或因个体消化能力差异导致其利用率不同有关,进而造成了肠道内底物可利用性的较大个体差异,最终表现为菌群结构的不稳定性。这种不稳定性可能是导致CP组在生长性能和部分健康指标上表现不佳的微生物生态学基础。
对肠道菌群结构的分析结果显示,各组样本中的主要菌门为芽孢杆菌门、弯曲杆菌门、假单胞菌门、拟杆菌门和热脱硫杆菌门,其中芽孢杆菌门相对丰度较高,这个特点与之前研究报道的中华鳖肠道菌群构成特点[26]基本一致。具体来看,FM组和FR组的优势菌门均为芽孢杆菌门,其中FM组相对丰度较高,达到31.71%。SP组和CP组则以弯曲杆菌门为主导,相对丰度分别为44.47%和44.40%。需要特别留意的是,弯曲杆菌门类群内包含多种条件致病菌[27],其在上述2组中的高相对丰度提示这2种饲料配方或提高中华鳖肠道炎症发生的概率,此发现与和前面部分观察到的结果相互印证。ES组的情况比较特别,热脱硫杆菌门相对丰度升高至45.49%;这类菌通常参与含硫化合物的代谢[28],其大量出现很可能与酶解豆粕过程中含硫氨基酸被释放出来有关。芽孢杆菌门与拟杆菌门的比值常被用来评估肠道微生物的平衡状态[29]。本研究结果显示,CP组该比值高于其他组,FR组次之。这说明小球藻粉和发酵菜籽粕的添加,可能有助于调节中华鳖肠道菌群的比例结构,帮助维持菌群的整体健康稳定。在属水平上,ES组肠道劳森菌属相对丰度异常升高,达到36.27%。该属中的模式菌株为已知的细胞内寄生致病菌类群,可特异性诱发肠道黏膜的增生性肠炎,造成绒毛萎缩和隐窝增生[30],这个特点与本研究中观测到的ES组肠道形态变化高度吻合。这种致病菌的爆发性增长,很可能是豆粕中某些抗原蛋白损伤了肠道黏膜免疫所引起的,这也构成了用酶解豆粕替代鱼粉时一个主要的风险点。相比之下,FR组虽然肠道结构也承受了一定压力,但它的菌群α多样性与FM组没有显著差别,而且也没有像ES组或SP组那样出现条件致病菌门或属的异常增殖。这表明,发酵过程有效去除了菜籽粕中的主要抗营养因子,从而塑造了一个相对稳定和健康的肠道微生态。这样的微生态环境,使得中华鳖能够在肠道结构可承受的范围内,维持正常的消化吸收和生理稳定,这也与其表现出的最佳生长性能和抗氧化能力相一致。
通过对各组肠道菌群进行LEfSe分析,以鉴定各组特有的标志微生物,这些标志微生物揭示出不同植物蛋白质源对中华鳖肠道菌群的影响是有差异的。在FM组中,单球杆菌属显著富集,这反映出在鱼粉饲喂下,中华鳖肠道菌群保持了一种相对稳定的功能状态。FR组既存在哈夫尼亚菌科这类条件致病菌,又共存果糖乳杆菌属(Fructobacillus)等有益菌,这一特征表明其菌群处于动态平衡状态,而这一状态可能构成该组生长性能良好但肠道形态存在轻微损伤的微生态基础。在SP组中,金黄杆菌属等在环境中罕见的菌属被显著富集,这提示螺旋藻或许借助其特殊的藻类多糖对肠道微环境实施了改变。ES组情况值得警惕,其显著富集的并非典型细菌,而是线粒体科及立克次氏体目等真核生物序列,这一现象提示该组肠道存在上皮细胞损伤和黏膜屏障破坏,同时与该组高相对丰度的劳森菌属共同指向较高的肠道炎症风险。由此可见,不同植物蛋白质源通过塑造特异的微生物标志类群,进而对中华鳖肠道健康产生截然不同的影响,这为评估植物蛋白质源的微生态效应提供了参考。

4 结论

在本试验条件下,4种部分替代鱼粉的植物蛋白质源中,发酵菜籽粕整体应用效果较好,能够提高中华鳖生长性能,并提高机体抗氧化能力;所有植物蛋白质源均对肠道组织形态造成一定压力,但发酵菜籽粕能够保持肠道菌群稳定;酶解豆粕虽也能提升某些抗氧化酶的活性,但却导致肠道劳森菌属的异常增殖;螺旋藻粉和小球藻粉在改善肌肉营养成分方面有一定潜力,但螺旋藻粉显著提高肠道弯曲杆菌门相对丰度,而小球藻粉则伴随着菌群丰富度下降和肝脏SOD活性降低。综合来看,发酵菜籽粕是替代中华鳖饲料中鱼粉的优选植物蛋白质源。
[1]
DAI F, CHEN S Y, SUN W, et al. Identification of Aeromonas hydrophila PS-1 and GFP-labeled tracking of its infection in Pelodiscus sinensis[J]. Aquaculture, 2026, 610:742914.

DOI

[2]
罗皓, 胡亚军, 朱波, 等. 中华鳖营养与饵料学研究进展[J]. 现代畜牧兽医, 2022(11):91-96.

LUO H, HU Y J, ZHU B, et al. Advances in nutrition and feed science of Chinese soft-shelled turtle (Trionyx sinensis)[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2022(11):91-96. (in Chinese)

[3]
庞垒, 徐静, 李华涛, 等. 不同动物蛋白源替代鱼粉的研究进展[J]. 饲料工业, 2025, 46(10):24-32.

PANG L, XU J, LI H T, et al. Research progress of substituting fish meal with different animal protein sources[J]. Feed Industry, 2025, 46(10):24-32. (in Chinese)

[4]
曾永姿. 植物蛋白源替代动物蛋白源的可行性及其对环境的影响[J]. 畜牧业环境, 2023(16):13-14.

ZENG Y Z. The feasibility of replacing animal protein sources with plant protein sources and its environmental impact[J]. Animal Industry and Environment, 2023(16):13-14. (in Chinese)

[5]
SHARIF M, ZAFAR M H, AQIB A I, et al. Single cell protein:sources,mechanism of production,nutritional value and its uses in aquaculture nutrition[J]. Aquaculture, 2021, 531:735885.

DOI

[6]
侯连杰, 徐谙为, 杨景武, 等. 植物蛋白原料替代鱼粉在水产养殖中应用现状及前景[J]. 科学养鱼, 2025(4):74-76.

HOU L J, XU A W, YANG J W, et al. Current situation and prospect of plant protein raw materials replacing fish meal in aquaculture[J]. Scientific Fish Farming, 2025(4):74-76. (in Chinese)

[7]
汪涛. 不同菌剂发酵软颗粒饲料对黄颡鱼生长、营养生理及肠道菌群的影响研究[D]. 硕士学位论文. 扬州: 扬州大学, 2024.

WANG T.Study on the effects of different fermented soft pellet feed on growth,nutritional physiology,and intestinal microbiota of Tachysurus fulvidraco[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2024. (in Chinese)

[8]
AOAC. Official methods of analysis of the Association of Official Analytical Chemists[S]. 20th ed. Rockville: AOAC International, 2016.

[9]
石桉宁, 王亚军. 发酵菜粕在水产养殖中的应用研究进展[J]. 科学养鱼, 2023(6):74-76.

SHI A N, WANG Y J. Research progress on the application of fermented rapeseed meal in aquaculture[J]. Scientific Fish Farming, 2023(6):74-76. (in Chinese)

[10]
LI Y X, LU X, DONG L X, et al. Replacing soybean meal with fermented rapeseed meal in diets: potential effects on growth performance,antioxidant capacity,and liver and intestinal health of juvenile tilapia (Oreochromis niloticus)[J]. Fish Physiology and Biochemistry, 2024, 50:1683-1699.

DOI

[11]
张遨然, 郑云凡, 尹望, 等. 发酵菜籽褐饼替代豆粕对鲤鱼生长性能、肉品质和肠道健康的影响[J]. 动物营养学报, 2024, 36(11):7212-7226.

DOI

ZHANG A R, ZHENG Y F, YIN W, et al. Effects of replacing soybean meal with fermented rapeseed brown cake on growth performance,meat quality and intestinal health of common carp (Cyprinus carpio)[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7212-7226. (in Chinese)

DOI

[12]
DOSSOU S, KOSHIO S, ISHIKAWA M, et al. Effect of partial replacement of fish meal by fermented rapeseed meal on growth,immune response and oxidative condition of red sea bream juvenile,Pagrus major[J]. Aquaculture, 2018, 490:228-235.

DOI

[13]
陈晨. 菜粕、发酵菜粕替代鱼粉及添加异硫氰酸酯对凡纳滨对虾(Litopenaeus vannamei)生长、生理生化和代谢的影响[D]. 硕士学位论文. 上海: 上海海洋大学, 2023.

CHEN C.Effect of rapeseed meal,fermented rapeseed meal substituting fishmeal and dietary isothiocyanate on growth,physiology,biochemistry and metabolism of Litopenaeus vannamei[D]. Master’s Thesis. Shanghai: Shanghai Ocean University, 2023. (in Chinese)

[14]
艾祖军, 李华. 植物蛋白替代鱼粉和添加瓜尔胶对鳟鱼肉质和饲料利用率的影响[J]. 中国饲料, 2019(6):65-70.

AI Z J, LI H. Effects of plant protein sources substitute of fish meal and addition of guar gum on meat quality and feed utilization of trout[J]. China Feed, 2019(6):65-70. (in Chinese)

[15]
SAKERS A, DE SIQUEIRA M K, SEALE P, et al. Adipose-tissue plasticity in health and disease[J]. Cell, 2022, 185(3):419-446.

DOI PMID

[16]
GONG Y, WENG M, WANG X N, et al. Effects of vegetable oil replacement on intramuscular fat deposition and flesh quality of large yellow croaker (Larimichthys crocea) juveniles[J]. Aquaculture, 2023, 575:739731.

DOI

[17]
KAUSHIK S J, COVÈS D, DUTTO G, et al. Almost total replacement of fish meal by plant protein sources in the diet of a marine teleost,the European seabass,Dicentrarchus labrax[J]. Aquaculture, 2004, 230(1/2/3/4):391-404.

DOI

[18]
TOCHER D R. Omega-3 long-chain polyunsaturated fatty acids and aquaculture in perspective[J]. Aquaculture, 2015, 449:94-107.

DOI

[19]
BHATTARAI S M, JHAWER A, FRAMPTON G, et al. Characterization of hepatic pathology during azoxymethane-induced acute liver failure[J]. World Journal of Gastroenterology, 2025, 31(12):103952.

[20]
LI Y L, ZHANG Y C, ZHU F. The formin-like regulates innate immunity and antibacterial immune responses in Scylla paramamosain[J]. Aquaculture, 2025, 599:742167.

DOI

[21]
EKIN S, YILDIZ H, ALP H H. NOX4,MDA,IMA and oxidative DNA damage:can these parameters be used to estimate the presence and severity of OSA?[J]. Sleep and Breathing, 2021, 25(1):529-536.

DOI

[22]
ZHONG C C, SONG C C, KOTZAMANIS Y P, et al. Effects of dietary manganese chelate (Mn-MHA) on growth,muscle characteristics and antioxidant capacity and inflammatory response of largemouth bass (Micropterus salmoides)[J]. Aquaculture, 2026, 612(Pt 1):743084.

DOI

[23]
SIMON A, LIPPEMEIER S, MUELLER J, et al. A question of digestion:how microalgae species affects lipid and fatty acid digestibility in rainbow trout (Oncorhynchus mykiss)[J]. Aquaculture, 2024, 593:741311.

DOI

[24]
李学丽, 王际英, 宋志东, 等. 酶解豆粕替代鱼粉对珍珠龙胆石斑鱼幼鱼生长和主要代谢酶活力的影响[J]. 海洋渔业, 2017, 39(5):529-538.

LI X L, WANG J Y, SONG Z D, et al. Effects of fishmeal replacement by hydrolyzed soybean meal on growth,body composition,digestive and metabolic enzyme activities of juvenile Epinephelus fuscoguttatus♀×Epinephelus lanceolatus♂[J]. Marine Fisheries, 2017, 39(5):529-538.

[25]
李祥, 何金环, 潘春梅, 等. 丁酸钠对鱼类肠道消化吸收的影响研究进展[J]. 中国畜牧兽医, 2022, 49(1):131-139.

DOI

LI X, HE J H, PAN C M, et al. Research progress on effects of sodium butyrate on intestinal digestion and absorption of fish[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(1):131-139. (in Chinese)

[26]
包宇航, 章新宇, 尹尚军, 等. 复方中草药对中华鳖肠道微生物菌群及非特异性免疫功能的影响[J]. 南方水产科学, 2023, 19(5):86-94.

BAO Y H, ZHANG X Y, YIN S J, et al. Effects of Chinese herbal compound on intestinal microbiota and non-specific immune function of Pelodiscus sinensis[J]. South China Fisheries Science, 2023, 19(5):86-94. (in Chinese)

[27]
赵旭, 庄佳荣, 李洪涛, 等. 丁酸梭菌和枯草芽孢杆菌配伍对肉鸡生长性能、血清生化指标及盲肠微生物区系的影响[J]. 动物营养学报, 2023, 35(2):845-854.

DOI

ZHAO X, ZHUANG J R, LI H T, et al. Effects of compatibility of Clostridium butyricum and Bacillus subtilis on growth performance,serum biochemical indices and cecal microflora of broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):845-854. (in Chinese)

DOI

[28]
HAFT D H, TOLSTOY I. Novel selenoprotein neighborhoods suggest specialized biochemical processes[J]. mSystems, 2025, 10(4):e01417-24.

[29]
李军涛, 解宜兴, 冼健安, 等. 酒糟酵母培养物部分替换饲料对草鱼生长性能及肠道微生物的影响[J]. 饲料研究, 2021, 44(7):63-68.

LI J T, XIE Y X, XIAN J A, et al. Effect of partial replacement of feed with distiller’s grains yeast culture on growth performance and intestinal microflora of grass carp (Ctenopharyngodon idellus)[J]. Feed Research, 2021, 44(7):63-68. (in Chinese)

[30]
CONRAD N L, ZORZI V S G, MAZZOLENI I, et al. Immunogenicity of a recombinant vaccine against Lawsonia intracellularis in mice[J]. Veterinary Vaccine, 2025, 4(3):100132.

DOI

文章导航

/