研究论文

白头翁皂苷B4对脂多糖诱导的奶牛乳腺上皮细胞氧化应激和炎症反应的缓解作用及其潜在机制

  • 张瀚文 , 1 ,
  • 丁瑜琰 1, * ,
  • 赵坤山 1 ,
  • 王娟 1 ,
  • 胡钰欣 1 ,
  • 徐尧孜 1 ,
  • 宗小兰 1 ,
  • 于臻凯 , 2, ** ,
  • 沈留红 , 1, **
展开
  • 1 四川农业大学动物医学院, 成都 611130
  • 2 久治县动物疫病预防控制中心, 久治 624700
** 于臻凯,兽医师,E-mail: ;
沈留红,教授,博士生导师,E-mail:

* 同等贡献作者

张瀚文(2001—),男,四川达州人,硕士研究生,从事兽医临床与天然产物应用研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-12-29

  网络出版日期: 2026-09-12

基金资助

国家自然科学基金资助项目(32473109)

四川省科学技术厅重点研发项目(2024YFFK0146)

本科生创业思维训练计划项目(2027201)

Alleviating Effects of Anemoside B4 on Lipopolysaccharide-Induced Oxidative Stress and Inflammatory Responses in Bovine Mammary Epithelial Cells and Its Potential Mechanisms

  • ZHANG Hanwen , 1 ,
  • DING Yuyan 1 ,
  • ZHAO Kunshan 1 ,
  • WANG Juan 1 ,
  • HU Yuxin 1 ,
  • XU Yaozi 1 ,
  • ZONG Xiaolan 1 ,
  • YU Zhenkai , 2, ** ,
  • SHEN Liuhong , 1, **
Expand
  • 1 College of Veterinary Medicine, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Jiuzhi County Animal Disease Prevention and Control Center, Jiuzhi 624700, China
** YU Zhenkai, veterinarian, E-mail: ;
SHEN Liuhong, professor, E-mail:

* Contributed equally

Received date: 2025-12-29

  Online published: 2026-09-12

摘要

本试验旨在探究白头翁皂苷B4(AB4)对脂多糖(LPS)诱导的奶牛乳腺上皮细胞氧化应激和炎症反应的缓解作用及其潜在机制。以MAC-T细胞为研究对象,首先确定LPS造模适宜浓度和AB4发挥作用的适宜浓度;在此基础上,对细胞分组并进行如下处理:基础培养基培养36 h(CON组);基础培养基培养12 h+10 μg/mL LPS培养24 h(LPS组);20 μmol/L AB4培养12 h+10 μg/mL LPS培养24 h(AB4+LPS组);20 μmol/L AB4培养12 h+基础培养基培养24 h(AB4组);基础培养基培养10 h+10 μmol/L活性氧(ROS)抑制剂N-乙酰半胱氨酸(NAC)培养2 h+10 μg/mL LPS培养24 h(NAC+LPS组);5 μmol/L 核因子E2相关因子2(Nrf2)特异性抑制剂ML385培养6 h+20 μmol/L AB4培养12 h+10 μg/mL LPS培养24 h(ML385+AB4+LPS组)。培养结束后收集细胞和上清液,检测细胞活力以及氧化应激、炎症反应、Nrf2和NF-κB通路相关指标。每组设3个重复,每个重复检测3次。结果显示:1)10 μg/mL LPS可显著降低细胞活力(P<0.05),显著升高白细胞介素-6(IL-6)、白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)mRNA相对表达量和ROS水平(P<0.05),成功构建细胞损伤模型。2)与LPS组相比,1、5、10、20 μmol/L AB4预处理可显著升高细胞活力(P<0.05),显著升高超氧化物歧化酶(SOD)活性和总抗氧化能力(T-AOC)(P<0.05),显著降低丙二醛(MDA)含量以及IL-6、IL-1βTNF-α的mRNA相对表达量和ROS水平(P<0.05),其中20 μmol/L AB4效果最优。3)AB4+LPS组Nrf2、血红素氧合酶-1(HO-1)、NAD(P)H:醌氧化还原酶1(NQO1)mRNA和蛋白相对表达量及Nrf2荧光强度均显著高于LPS组(P<0.05)。4)AB4+LPS组和NAC+LPS组白细胞介素-6(IL-6)、白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)的mRNA相对表达量,以及p65、NF-κB抑制蛋白α(IκBα)磷酸化水平和p65荧光强度均显著低于LPS组(P<0.05);NAC+LPS组ROS水平及IL-6、IL-1β、TNF-α分泌水平均显著低于LPS组(P<0.05)。5)与AB4+LPS组相比,ML385+AB4+LPS组Nrf2的mRNA、蛋白相对表达量和荧光强度以及SOD活性和T-AOC均显著降低(P<0.05),MDA含量、ROS水平显著升高(P<0.04),同时IL-6、IL-1βTNF-α的mRNA和蛋白相对表达量以及p65、IκBα磷酸化水平和p65荧光强度也显著升高(P<0.05)。综上可知,AB4可通过激活Nrf2通路增强细胞抗氧化防御能力并清除ROS,进而抑制NF-κB通路介导的炎症反应,有效缓解LPS诱导的MAC-T细胞氧化应激与炎症反应,恢复细胞活力。

本文引用格式

张瀚文 , 丁瑜琰 , 赵坤山 , 王娟 , 胡钰欣 , 徐尧孜 , 宗小兰 , 于臻凯 , 沈留红 . 白头翁皂苷B4对脂多糖诱导的奶牛乳腺上皮细胞氧化应激和炎症反应的缓解作用及其潜在机制[J]. 动物营养学报, 2026 , 38(9) : 6975 -6990 . DOI: 10.12418/CJAN2026.557

Abstract

This study aimed to investigate the alleviating effects of anemoside B4 (AB4) on lipopolysaccharide (LPS)-induced oxidative stress and inflammatory responses in bovine mammary epithelial cells and its potential mechanisms. Using MAC-T cells as the research subject, the appropriate concentration of LPS for modeling and the effective concentration of AB4 were first determined. On this basis, cells were divided into groups and treated as follows: basal medium for 36 h (CON group); basal medium for 12 h followed by 10 μg/mL LPS for 24 h (LPS group); 20 μmol/L AB4 for 12 h followed by 10 μg/mL LPS for 24 h (AB4+LPS group); 20 μmol/L AB4 for 12 h followed by basal medium for 24 h (AB4 group); basal medium for 10 h followed by 10 μmol/L reactive oxygen species (ROS) inhibitor N-acetylcysteine (NAC) for 2 h followed by 10 μg/mL LPS for 24 h (NAC+LPS group); 5 μmol/L nuclear factor E2-related factor 2 (Nrf2)-specific inhibitor ML385 for 6 h followed by 20 μmol/L AB4 for 12 h followed by 10 μg/mL LPS for 24 h (ML385+AB4+LPS group). After treatment, cells and supernatants were collected to measure cell viability and indicators related to oxidative stress, inflammatory responses, and the Nrf2 and NF-κB pathways. Each group was set up with three replicates, and each replicate was measured three times. The results showed as follows: 1) 10 μg/mL LPS significantly decreased cell viability (P<0.05), and significantly increased the mRNA relative expression levels of interleukin-6 (IL-6), interleukin-1β (IL-1β), tumor necrosis factor-α (TNF-α) and ROS level (P<0.05), indicating that the cellular injury model was successfully established. 2) Compared with the LPS group, pretreatment with 1, 5, 10 and 20 μmol/L AB4 significantly increased cell viability (P<0.05), significantly increased superoxide dismutase (SOD) activity and total antioxidant capacity (T-AOC) (P<0.05), and significantly decreased malondialdehyde (MDA) content, as well as the mRNA relative expression levels of IL-6, IL-1β and TNF-α and ROS level (P<0.05), with 20 μmol/L AB4 showing the optimal effect. 3) The mRNA and protein relative expression levels of Nrf2, heme oxygenase-1 (HO-1) and NAD(P)H: quinone oxidoreductase 1 (NQO1), as well as Nrf2 fluorescence intensity in the AB4+LPS group were significantly higher than those in the LPS group (P<0.05). 4) The mRNA relative expression levels of IL-6, IL-1β and TNF-α, the phosphorylation levels of p65 and nuclear factor-κB inhibitor protein α (IκBα) and p65 fluorescence intensity in the AB4+LPS group and NAC+LPS group were significantly lower than those in the LPS group (P<0.05); ROS level and the secretion levels of IL-6, IL-1β and TNF-α in the NAC+LPS group were significantly lower than those in the LPS group (P<0.05). 5) Compared with the AB4+LPS group, the mRNA and protein relative expression levels and fluorescence intensity of Nrf2, as well as SOD activity and T-AOC in the ML385+AB4+LPS group were significantly decreased (P<0.05), while MDA content and ROS level were significantly increased (P<0.05), and the mRNA and protein relative expression levels of IL-6, IL-1β and TNF-α, as well as the phosphorylation levels of p65 and IκBα and p65 fluorescence intensity were also significantly increased (P<0.05). In conclusion, AB4 can enhance cellular antioxidant defense capacity and scavenge ROS by activating the Nrf2 pathway, thereby inhibiting NF-κB pathway-mediated inflammatory responses, and effectively alleviating LPS-induced oxidative stress and inflammatory responses in MAC-T cells, ultimately restoring cell viability.

乳腺炎是奶牛养殖中最常见的疾病之一,主要由病原微生物感染乳腺引起[1]。其中革兰氏阴性菌引发的乳腺炎往往发病更加迅速、症状更严重,这与其细胞壁中的致炎因子脂多糖(lipopolysaccharide,LPS)有关[2-3]。细菌侵入乳腺后大量释放LPS,LPS通过结合奶牛乳腺上皮细胞(bovine mammary epithelial cells,bMECs)膜上的Toll样受体4(Toll-like receptor 4,TLR4),进而启动细胞内信号级联反应,最终导致白细胞介素-6(interleukin-6,IL-6)、白细胞介素-1β(interleukin-1β,IL-1β)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)等炎症因子和活性氧(reactive oxygen species,ROS)大量产生,引起bMECs氧化应激和炎症反应[4]。而bMECs作为乳腺的主要泌乳细胞,同时也是构成血乳屏障(blood-milk barrier,BMB)的主要部分[5]。一旦bMECs发生损伤,可导致BMB受损,使大量微生物进入乳腺并进一步加剧乳腺炎[6]。因此,抑制LPS诱导的bMECs氧化应激和炎症反应是治疗乳腺炎的关键策略之一[7]。在炎症介质刺激下,炎症反应关键通路核因子-κB(nuclear factor-κB,NF-κB)被激活并诱发剧烈炎症反应[8]。核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)是细胞中调节氧化应激的重要转录因子。正常情况下,Nrf2与细胞质内Kelch样环氧氯丙烷相关蛋白1(Kelch-like epichlorohydrin-associated protein 1,Keap1)结合而被抑制;当Nrf2被激活后,可发生核转位并与抗氧化反应元件结合,启动下游抗氧化基因血红素氧合酶-1(heme oxygenase-1,HO-1)和NAD(P)H:醌氧化还原酶1[NAD(P)H: quinone oxidoreductase 1,NQO1]的转录表达[9]。已有研究表明,激活Nrf2可清除ROS,进而抑制NF-κB通路活化,该机制已在小胶质细胞模型中得到验证[10]。基于上述机制,推测通过激活Nrf2清除bMECs内过量ROS,能够有效减轻乳腺上皮细胞的炎症反应。
近年来,天然植物提取物作为抗生素替代品用于治疗奶牛乳腺炎的研究逐年增多[11]。白头翁皂苷B4(anemoside B4,AB4)是从白头翁中提取的天然五环三萜类皂苷,具有抗炎[12]、抗氧化[13]、抗病毒[14]和免疫调节[15]等生物活性,在诸多炎症性病理模型(如结肠炎[16]、关节炎[17]、肺炎[18])的治疗中效果显著。课题组前期研究发现,AB4可有效降低乳汁中体细胞数和血浆中炎症因子水平、恢复抗氧化能力,提高免疫因子水平,对奶牛临床型乳腺炎具有良好临床治疗效果[19-20];此外,汪培嘉等[21]研究表明,AB4对奶牛隐性乳腺炎也有明显疗效。然而,目前AB4作用于奶牛乳腺炎的具体分子机制尚未完全阐明。鉴于此,本试验以LPS诱导奶牛乳腺上皮细胞建立细胞损伤模型的基础上,探究AB4对bMECs氧化应激与炎症损伤的缓解作用及其潜在机制,旨在为AB4在奶牛乳腺炎临床治疗中的应用提供理论依据,助力奶牛养殖业健康减抗发展。

1 材料与方法

1.1 主要试剂

DMEM/F12培养基、0.25%胰蛋白酶购自美国Gibco公司;10%胎牛血清(FBS)购自武汉普诺赛生命科技有限公司;1%青霉素-链霉素双抗、ROS荧光检测试剂盒购自亚科因(武汉)生物技术有限公司;LPS(来源于大肠杆菌O55:B5)、4’,6-二脒基-2-苯基吲哚(4’,6-diamidino-2-phenylindole,DAPI)染色液购自西格玛奥德里奇(上海)贸易有限公司;AB4(纯度≥98%)购自北京索莱宝科技有限公司;ROS抑制剂N-乙酰半胱氨酸(NAC)、Nrf2特异性抑制剂ML385购自美国Med Chem Express公司;总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、丙二醛(MDA)、IL-6、IL-1β、TNF-α检测试剂盒均购自上海碧云天生物技术有限公司;FITC荧光二抗购自美国Proteintech公司;RNA Easy Fast动物组织总RNA提取试剂盒、FastKing cDNA合成预混试剂盒、FastReal荧光定量PCR预混试剂盒购自天根生化科技(北京)有限公司;p-p65、NF-κB抑制蛋白α(IκBα)、p-IκBα一抗购自北京博奥森生物技术有限公司;Nrf2一抗购自成都正能生物技术有限责任公司;p65、HO-1、NQO1、IL-6、IL-1β、β-肌动蛋白(β-actin)一抗购自杭州华安生物技术有限公司;TNF-α一抗购自美国Abcam公司。

1.2 试验方法

1.2.1 细胞培养

MAC-T细胞购自上海富衡生物科技有限公司。MAC-T细胞在37 ℃、5% CO2条件下,使用含有10%胎牛血清和1%双抗的DMEM/F12培养基培养,当细胞汇合度达到80%~90%时,使用0.25%胰蛋白酶消化细胞,并调整成适宜浓度的细胞悬液接种于细胞培养板。

1.2.2 试验设计

细胞按照试验设计分为不同的组,每组设3个重复,每个重复检测3次。具体分组方案及检测指标如下。
(1)LPS造模适宜浓度筛选:设置对照组(CON组,基础培养基培养)和不同浓度LPS组(1、2、5、10、20、40 μg/mL LPS),培养时间为24 h。检测细胞活力、IL-6、IL-1βTNF-α的mRNA相对表达量和ROS水平,以筛选LPS造模适宜浓度。
(2)AB4的缓解作用及适宜浓度筛选:设置CON组(基础培养基培养36 h)、不同浓度AB4组(0.1、0.5、1、5、10、20、50、100 μmol/L AB4培养12 h+基础培养基培养24 h)、LPS组(基础培养基培养12 h+适宜浓度LPS培养24 h)和不同浓度AB4+LPS组(0.1、0.5、1、5、10、20、50 μmol/L AB4培养12 h+适宜浓度LPS培养24 h)。检测细胞活力,IL-6、IL-1β、TNF-α分泌水平,SOD活性、T-AOC、MDA含量及ROS水平,以探究AB4对LPS诱导的MAC-T细胞氧化应激和炎症反应的缓解作用,并筛选AB4发挥缓解作用的适宜浓度。
(3)AB4对Nrf2和NF-κB通路调控作用的验证:设置CON组(基础培养基培养36 h)、LPS组(基础培养基培养12 h+适宜浓度LPS培养24 h)、AB4+LPS组(20 μmol/L AB4培养12 h+适宜浓度LPS培养24 h)、AB4组(20 μmol/L AB4培养12 h+基础培养基培养24 h)、NAC+LPS组(基础培养基培养10 h+10 μmol/L NAC培养2 h+适宜浓度LPS培养24 h)。检测Nrf2、HO-1、NQO1、IL-6、IL-1βTNF-α的mRNA及蛋白相对表达量,p65、IκBα磷酸化水平和Nrf2、p65荧光强度,以探究AB4和NAC对Nrf2和NF-κB通路的影响。
(4)Nrf2抑制剂回补试验:设置CON组(基础培养基培养42 h)、LPS组(基础培养基培养18 h+适宜浓度LPS培养24 h)、AB4+LPS组(基础培养基培养6 h+20 μmol/L AB4培养12 h+适宜浓度LPS培养24 h)、ML385+AB4+LPS组(5 μmol/L ML385培养6 h+20 μmol/L AB4培养12 h+适宜浓度LPS培养24 h)。检测氧化应激、炎症反应、Nrf2和NF-κB通路相关指标,进一步验证AB4缓解细胞氧化应激与炎症反应的作用是否依赖Nrf2通路。

1.2.3 细胞活力检测

按照1.2.2中(1)和(2)分组方案处理细胞。培养结束后,每孔加入10 μL CCK-8检测液,置于细胞培养箱中继续孵育2 h后,随后使用酶标仪检测450 nm处的吸光度(OD)值。以仅含培养基和CCK-8检测液、不含细胞的孔作为空白孔,按以下公式计算细胞活力:
细胞活力(%)=[(试验孔OD值-空白孔OD值)/(对照孔OD值-空白孔OD值)]×100。

1.2.4 细胞内ROS水平检测

按照1.2.2中(1)、(2)、(3)和(4)分组方案处理细胞。培养结束后将ROS检测试剂盒中的2,7-二氯荧光素二乙酸酯(DCFH-DA)探针,按1∶1 000用无血清培养基稀释至浓度为10 μmol/L。试验组每孔加入1 mL稀释后的DCFH-DA,阳性对照孔加入对照试剂RosUP,37 ℃孵育30 min。用无血清培养基清洗细胞3次,以充分去除未进入细胞的DCFH-DA。用镊子取下爬片置于载玻片上。使用荧光显微镜观察并获取ROS荧光图像,采用Image J软件量化荧光强度,以评估ROS水平。

1.2.5 细胞内抗氧化指标及炎症因子分泌水平检测

按照1.2.2中(2)和(4)分组方案处理细胞。培养结束后,收集细胞上清液;同时刮取并离心收集细胞沉淀,经超声破碎后以BCA法测定蛋白质浓度。随后,按试剂盒说明书操作,分别检测细胞上清液中炎症因子(IL-6、IL-1β、TNF-α)分泌水平,以及细胞裂解液中抗氧化指标(T-AOC、SOD活性与MDA含量)。

1.2.6 免疫荧光检测

按照1.2.2中(3)和(4)分组方案处理细胞。培养结束后,每孔细胞用磷酸盐缓冲液(PBS)漂洗3次(5 min/次),加入1 mL 4%多聚甲醛固定30 min并晾干;随后加入0.1% Triton X-100室温通透细胞30 min,PBS清洗3次(3 min/次);1% BSA室温封闭1 h,含吐温-20的磷酸盐缓冲液(PBST)清洗3次(5 min/次);加入一抗4 ℃封闭过夜,PBS漂洗3次(5 min/次);加入FITC荧光二抗(1∶200稀释)处理1 h后,用TBST稀释的DAPI染色液复染10 min,PBST清洗3次(5 min/次);滴加少量防猝灭剂,用指甲油封片,于荧光显微镜下采集图像,ImageJ软件进行荧光强度定量分析。

1.2.7 实时荧光定量PCR(qRT-PCR)检测

按照1.2.2中(1)、(3)和(4)分组方案处理细胞。培养结束后根据试剂盒说明,使用RNA Easy Fast动物组织总RNA提取试剂盒从细胞中提取总RNA,并通过NanoDrop One C分光光度计(Thermo Scientific,美国)评估提取的总RNA的纯度和浓度。将提取的总RNA通过FastKing cDNA合成预混试剂盒反转录合成cDNA。引物使用Primer 5软件设计,经NCBI Primer-Blast系统进行种属引物特异性比对,由生工生物工程(上海)股份有限公司合成,引物序列信息详见表1。qRT-PCR使用FastReal荧光定量PCR预混试剂盒,在荧光定量PCR仪上完成。PCR反应体系:2×Fast Real qPCR PreMix 10 μL、上游引物 0.6 μL、下游引物 0.6 μL、cDNA模板 2 μL、dd H2O 6.8 μL。扩增程序:95 ℃预变性2 min;95 ℃变性5 s,60 ℃退火/延伸15 s(47个循环)。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因(其在MAC-T细胞中表达稳定),采用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表1 引物序列

Table 1 Primer sequences

基因名称
Gene names
GenBank登录号
GenBank accession number
引物序列
Primer sequences
片段长度
Fragment
length/bp
白细胞介素-6
IL-6
NM_173923.2 F:5'-GGAGGAAAAGGACGGATGCT-3'
R:5'-GGTCAGTGTTTGTGGCTGGA-3'
227
肿瘤坏死因子-α
TNF-α
NM_173966.3 F:5'-CTTCTGCCTGCTGCACTTCG-3'
R:5'-GAGTTGATGTCGGCTACAACG-3'
156
白细胞介素-1β
IL-1β
NM_174093.1 F:5'-ATGAAGAGCTGCATCCAACACCTG-3'
R:5'-ACCGACACCACCTGCCTGAAG-3'
110
核因子E2相关因子2
Nrf2
XM_005202311.5 F:5'-CCAGCACAACACATACCA-3'
R:5'-TAGCCGAAGAAACCTCATT-3'
154
血红素氧合酶-1
HO-1
NM_001014912.1 F:5'-GAACGCAACAAGGAGAAC-3'
R:5'-CTGGAGTCGCTGAACATAG-3'
162
NAD(P)H:醌氧化还原酶1
NQO1
NM_001034535.1 F:5'-CAACAGACCAGCCAATCA-3'
R:5'-ACCTCCCATCCTTTCCTC-3'
144
甘油醛-3-磷酸脱氢酶
GAPDH
NM_001034034.2 F:5'-GGGTCATCATCTCTGCACCT-3'
R:5'-GGTCATAAGTCCCTCCACGA-3'
176

1.2.8 蛋白质免疫印迹(Western Blot)检测

按照1.2.2中(3)和(4)处理细胞。培养结束后每孔加入1 mL含苯甲基磺酰氟(PMSF)的RIPA裂解液裂解细胞,并转移至离心管中,4 ℃下12 000×g离心10 min取上清。采用BCA法检测蛋白质浓度。通过十二烷基磺酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)将蛋白转至聚偏二氟乙烯(PVDF)膜上。转膜完成后TBST洗膜5 min,使用快速封闭液在37 ℃封闭15 min;膜用TBST漂洗3次(5 min/次)。使用TBST稀释一抗,将膜分别与以下一抗于4 ℃孵育过夜:p-p65(1∶2 000)、IκBα(1∶2 000)、p-IκBα(1∶1 000)、Nrf2(1∶2 000)、p65(1∶2 000)、HO-1(1∶2 000)、NQO1(1∶5 000)、IL-6(1∶1 000)、IL-1β(1∶5 000)、TNF-α(1∶1 000)及β-actin(1∶10 000)。次日用TBST漂洗3次(15 min/次),后经二抗室温孵育60 min。再次用TBST漂洗3次(15 min/次),置于化学发光成像仪,膜上滴满ECL显色液曝光。使用ImageJ软件分析图像,以β-actin为内参蛋白,对目的蛋白的相对表达量进行归一化处理。

1.3 数据处理与分析

所有试验数据用“平均值±标准误”表示,采用ANOVA程序进行单因素方差分析,并采用Duncan氏法进行组间多重比较。P<0.05表示差异显著,P>0.05表示差异不显著。最终结果由GraphPad Prism 10.1.2绘图呈现。

2 结果与分析

2.1 LPS诱导MAC-T细胞损伤模型的建立

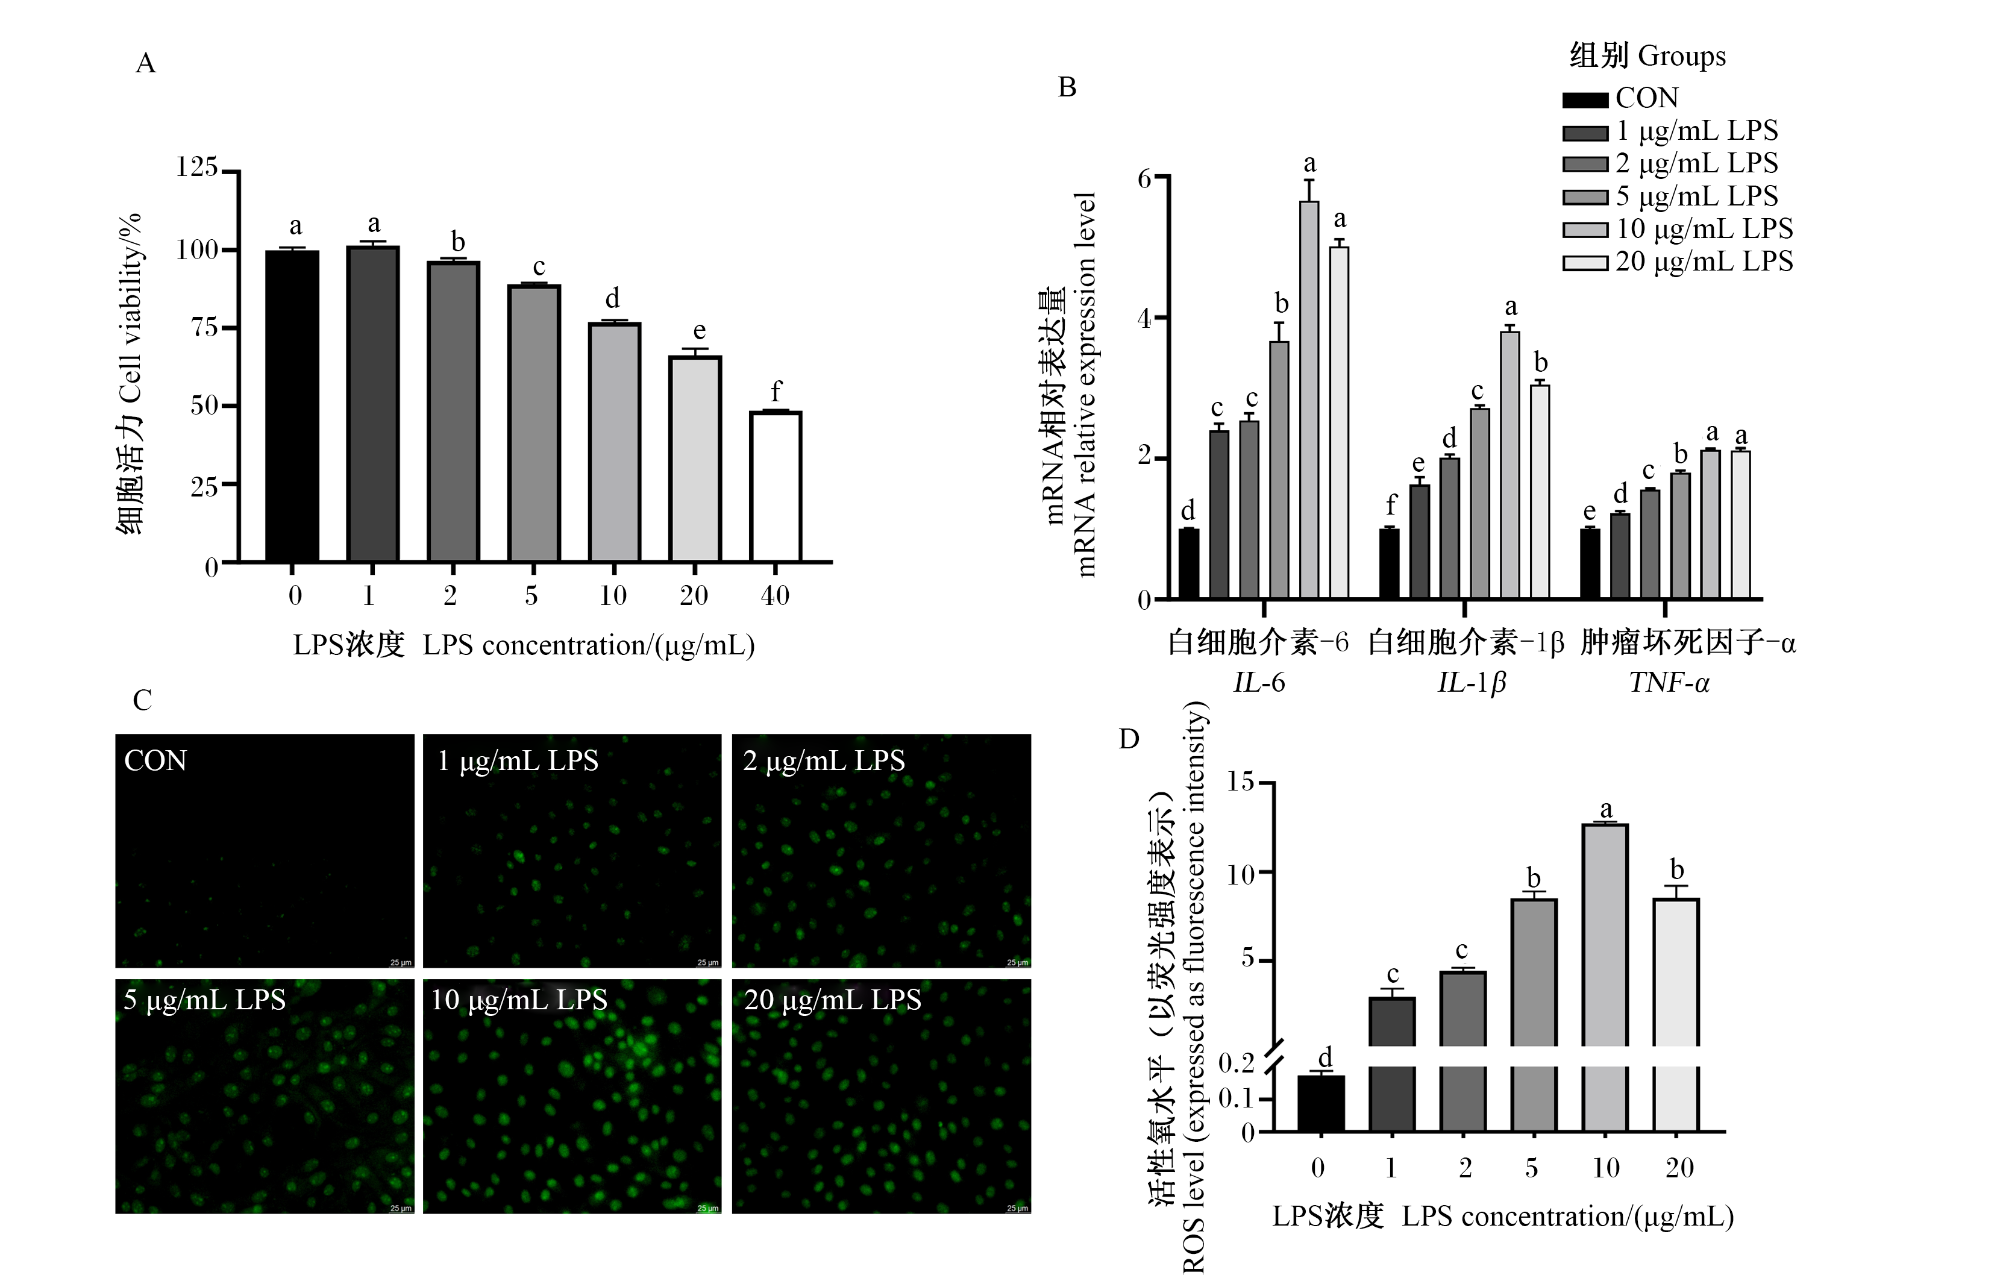
图1-A所示,除1 μg/mL LPS组外,其余各浓度LPS组细胞活力均显著低于CON组(P<0.05),其中40 μg/mL LPS组细胞活力降至(48.48±0.12)%,细胞活力过低,故后续造模浓度筛选范围设定为0~20 μg/mL。结合图1-B图1-C图1-D结果可知,与CON组相比,该区间内各浓度LPS均可显著升高IL-6、IL-1βTNF-α的mRNA相对表达量和ROS水平(P<0.05),且以10 μg/mL LPS的效果最佳。因此,本试验最终选取10 μg/mL为LPS造模适宜浓度。
图1 不同浓度LPS对MAC-T细胞的损伤

A:不同浓度LPS对MAC-T细胞活力的影响;B:不同浓度LPS对MAC-T细胞炎症相关基因表达的影响;C、D:不同浓度LPS对MAC-T细胞ROS水平的影响。

数据柱标记相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of different concentrations of LPS on injury in MAC-T cells

A: effects of different concentrations of LPS on MAC-T cells viability; B: effects of different concentrations of LPS on inflammation-related gene expression in MAC-T cells; C and D: effects of different concentrations of LPS on ROS level in MAC-T cells.

Data columns with the same letter indicate no significant difference (P>0.05), while different letters indicate significant differences (P<0.05). The same as below.

2.2 AB4对LPS诱导的MAC-T细胞损伤的缓解作用

2.2.1 AB4对LPS诱导的MAC-T细胞活力的影响
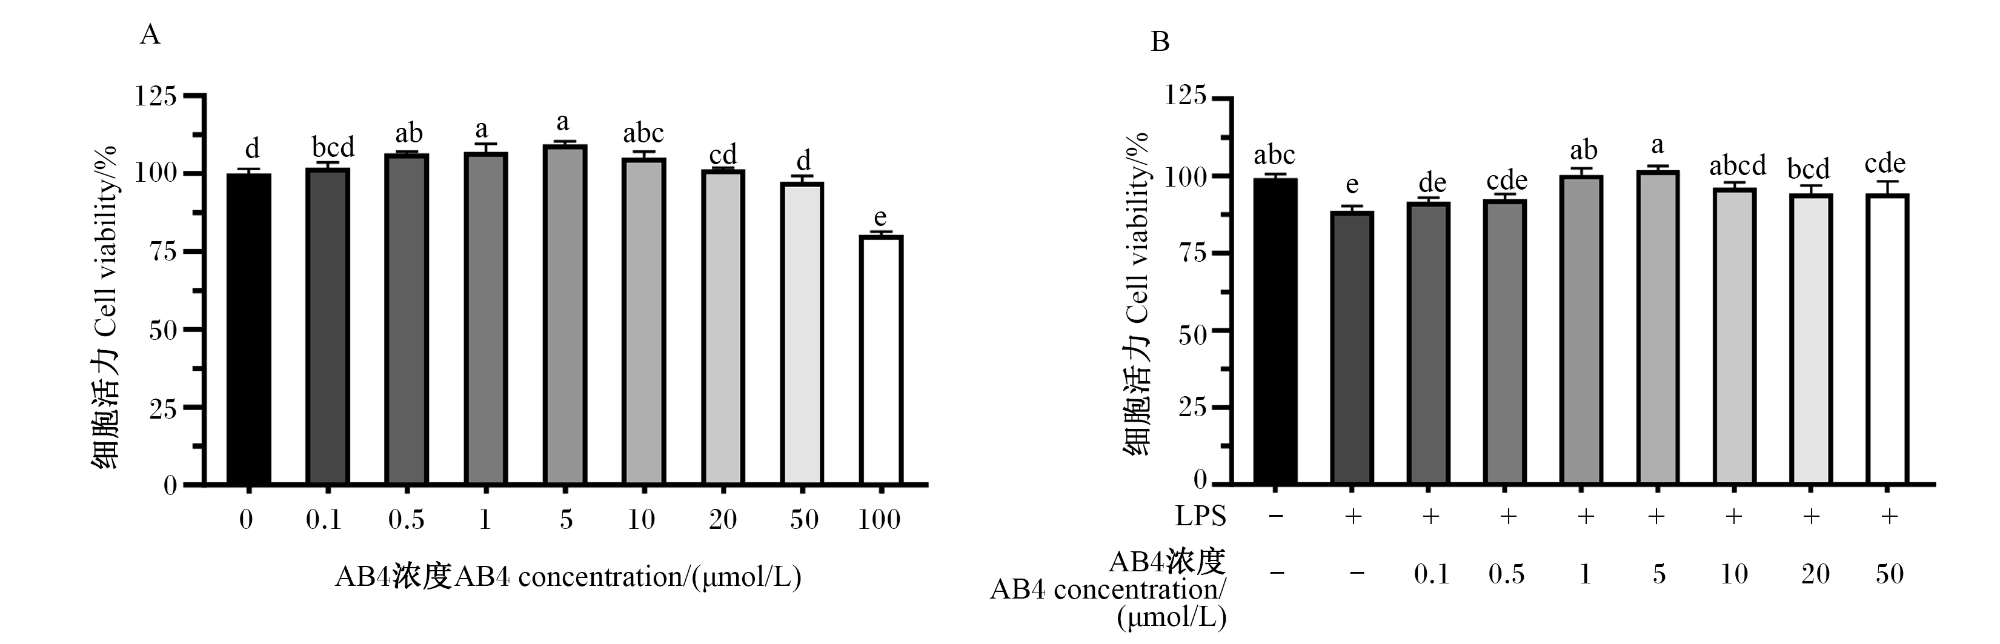
图2-A所示,与CON组相比,0.1、20、50 μmol/L AB4对细胞活力无显著影响(P>0.05);0.5、1、5、10 μmol/L AB4可显著提升细胞活力(P<0.05);100 μmol/L AB4则会显著抑制细胞活力(P<0.05)。上述结果表明100 μmol/L AB4对MAC-T细胞具有细胞毒性,因此后续选取0.1~50 μmol/L AB4预处理MAC-T细胞后再进行LPS处理后对细胞活力进行检测。如图2-B所示,与CON组相比,单独LPS处理可显著降低细胞活力(P<0.05);与LPS组相比,0.1、0.5、50 μmol/L AB4+LPS组细胞活力无显著变化(P>0.05),1、5、10、20 μmol/L AB4+LPS组细胞活力均显著升高(P<0.05)。因此,选择1、5、10、20 μmol/L 4个AB4浓度进行氧化应激和炎症反应缓解作用试验。
图2 不同浓度AB4对LPS诱导的MAC-T细胞活力的影响

Fig.2 Effects of different concentrations of AB4 on viability of LPS-induced MAC-T cells

2.2.2 AB4对LPS诱导的MAC-T细胞氧化应激的影响

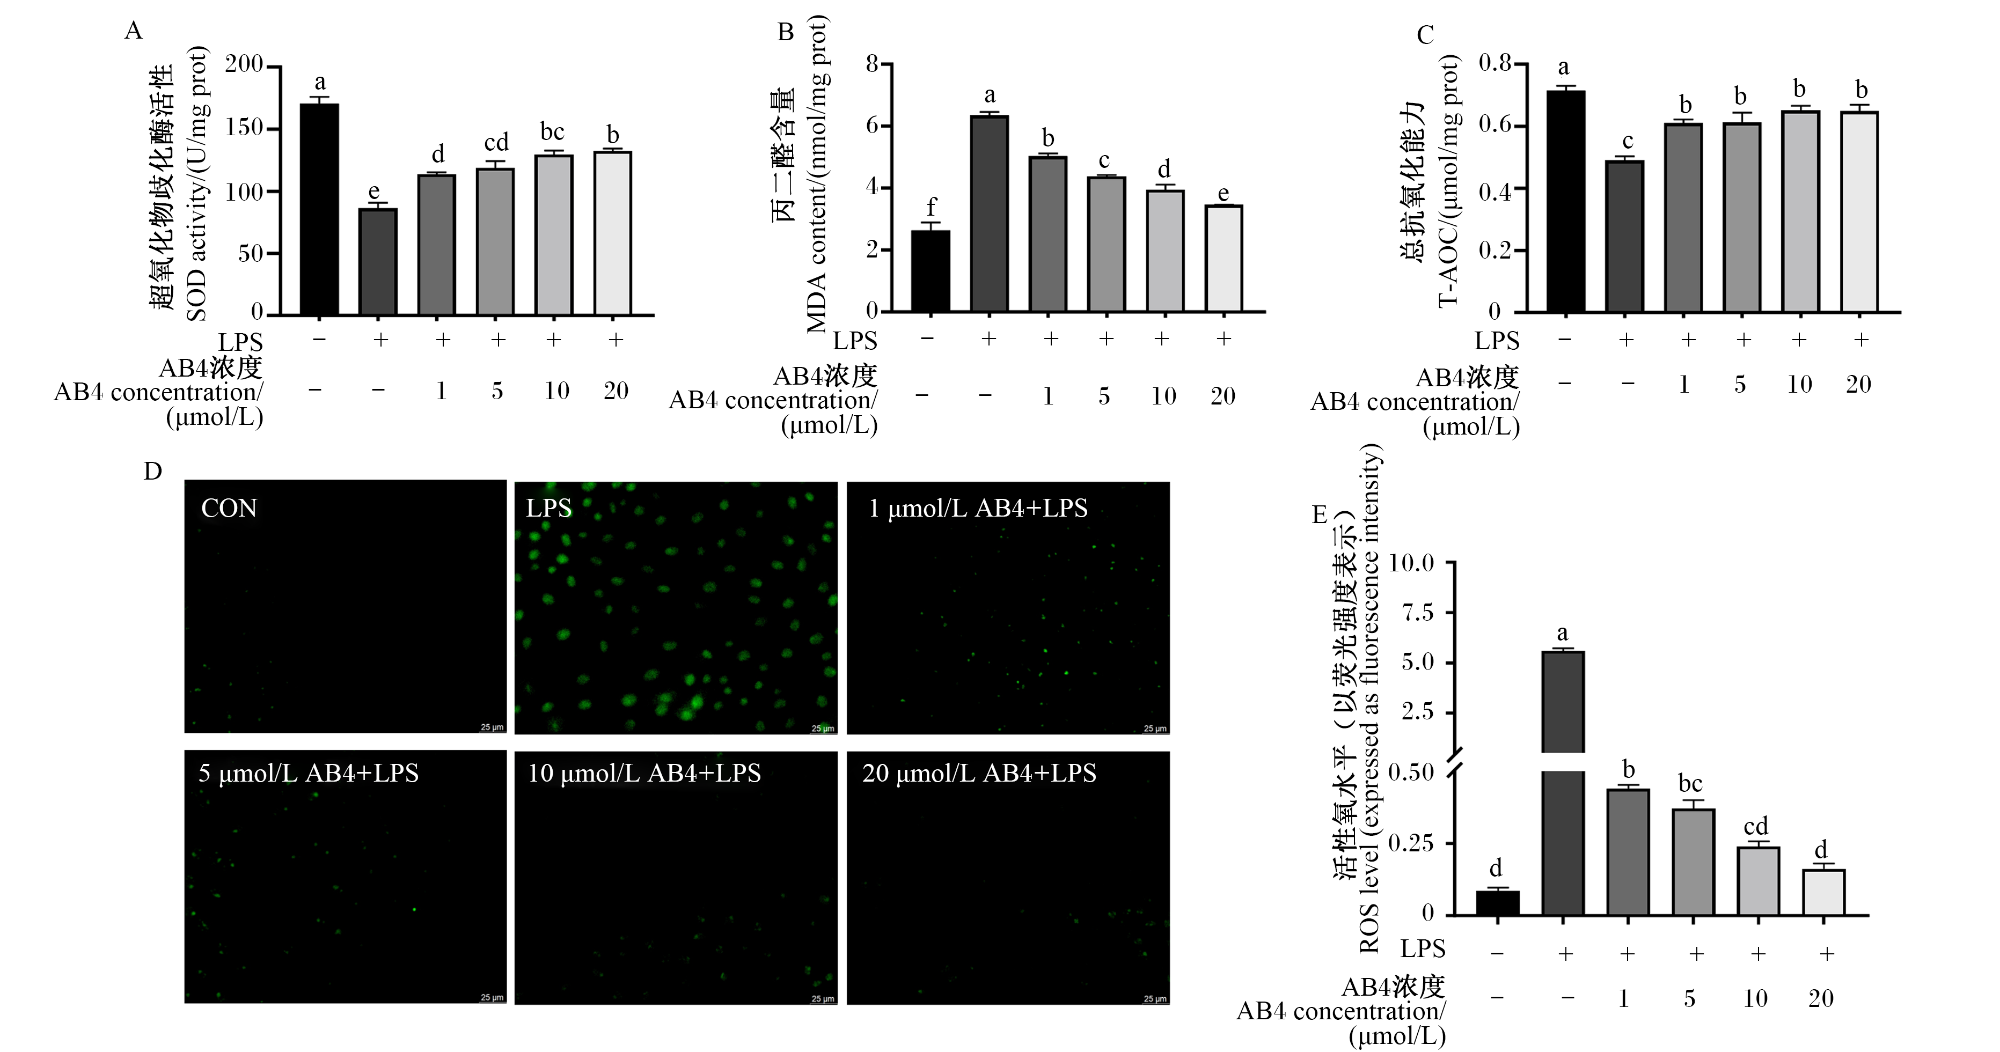
图3所示,与CON组相比,单独LPS处理可显著降低SOD活性、T-AOC(P<0.05),同时显著提高MDA含量和ROS水平(P<0.05)。与LPS组相比,1、5、10、20 μmol/L AB4+LPS组SOD活性、T-AOC均显著升高(P<0.05),MDA含量和ROS水平均显著降低(P<0.05);随着AB4浓度由1 μmol/L升至20 μmol/L,SOD活性、T-AOC呈浓度依赖性上升,ROS水平呈浓度依赖性下降;MDA含量在1~10 μmol/L范围内随AB4浓度升高逐步降低,20 μmol/L后略有回升。
图3 不同浓度AB4对LPS诱导的MAC-T细胞氧化应激的影响

Fig.3 Effects of different concentrations of AB4 on oxidative stress in LPS-induced MAC-T cells

2.2.3 AB4对LPS诱导的MAC-T细胞炎症反应的影响

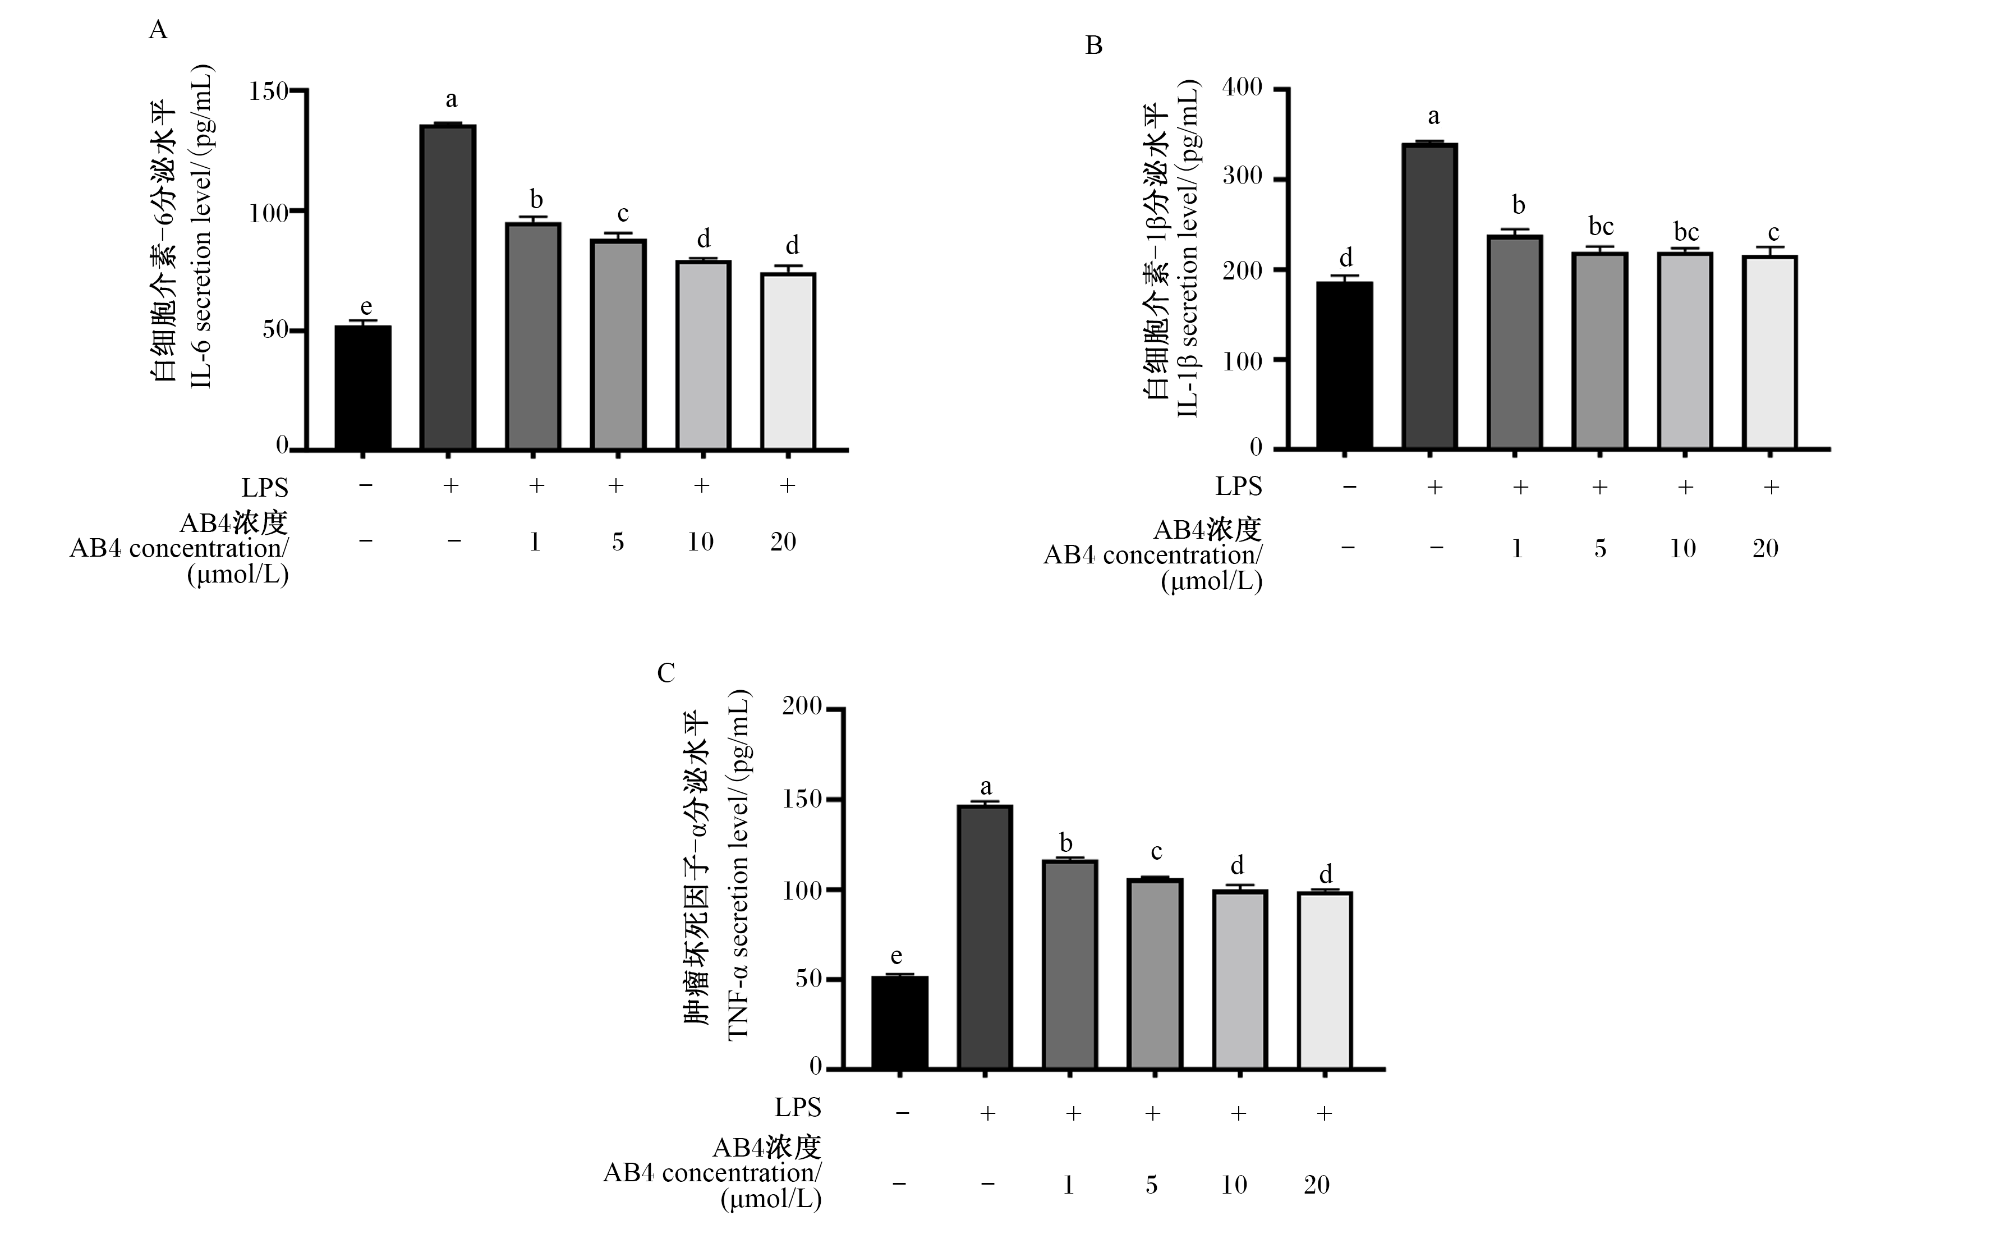
图4所示,与CON组相比,单独LPS处理时IL-6、IL-1β和TNF-α的分泌水平均显著增加(P<0.05);与LPS组相比,1、5、10、20 μmol/L AB4+LPS组IL-6、IL-1β和TNF-α的分泌水平均显著降低(P<0.05),且上述炎症因子的分泌水平均呈浓度依赖性降低。其中,20 μmol/L AB4对炎症反应的抑制效果最明显,因此确定20 μmol/L为AB4发挥作用的适宜浓度。
图4 不同浓度AB4对LPS诱导的MAC-T细胞炎症反应的影响

Fig.4 Effects of different concentrations of AB4 on inflammatory response in LPS-induced MAC-T cells

2.3 AB4对MAC-T细胞中Nrf2通路的调控作用

2.3.1 AB4对MAC-T细胞中Nrf2通路中关键基因和蛋白表达的影响
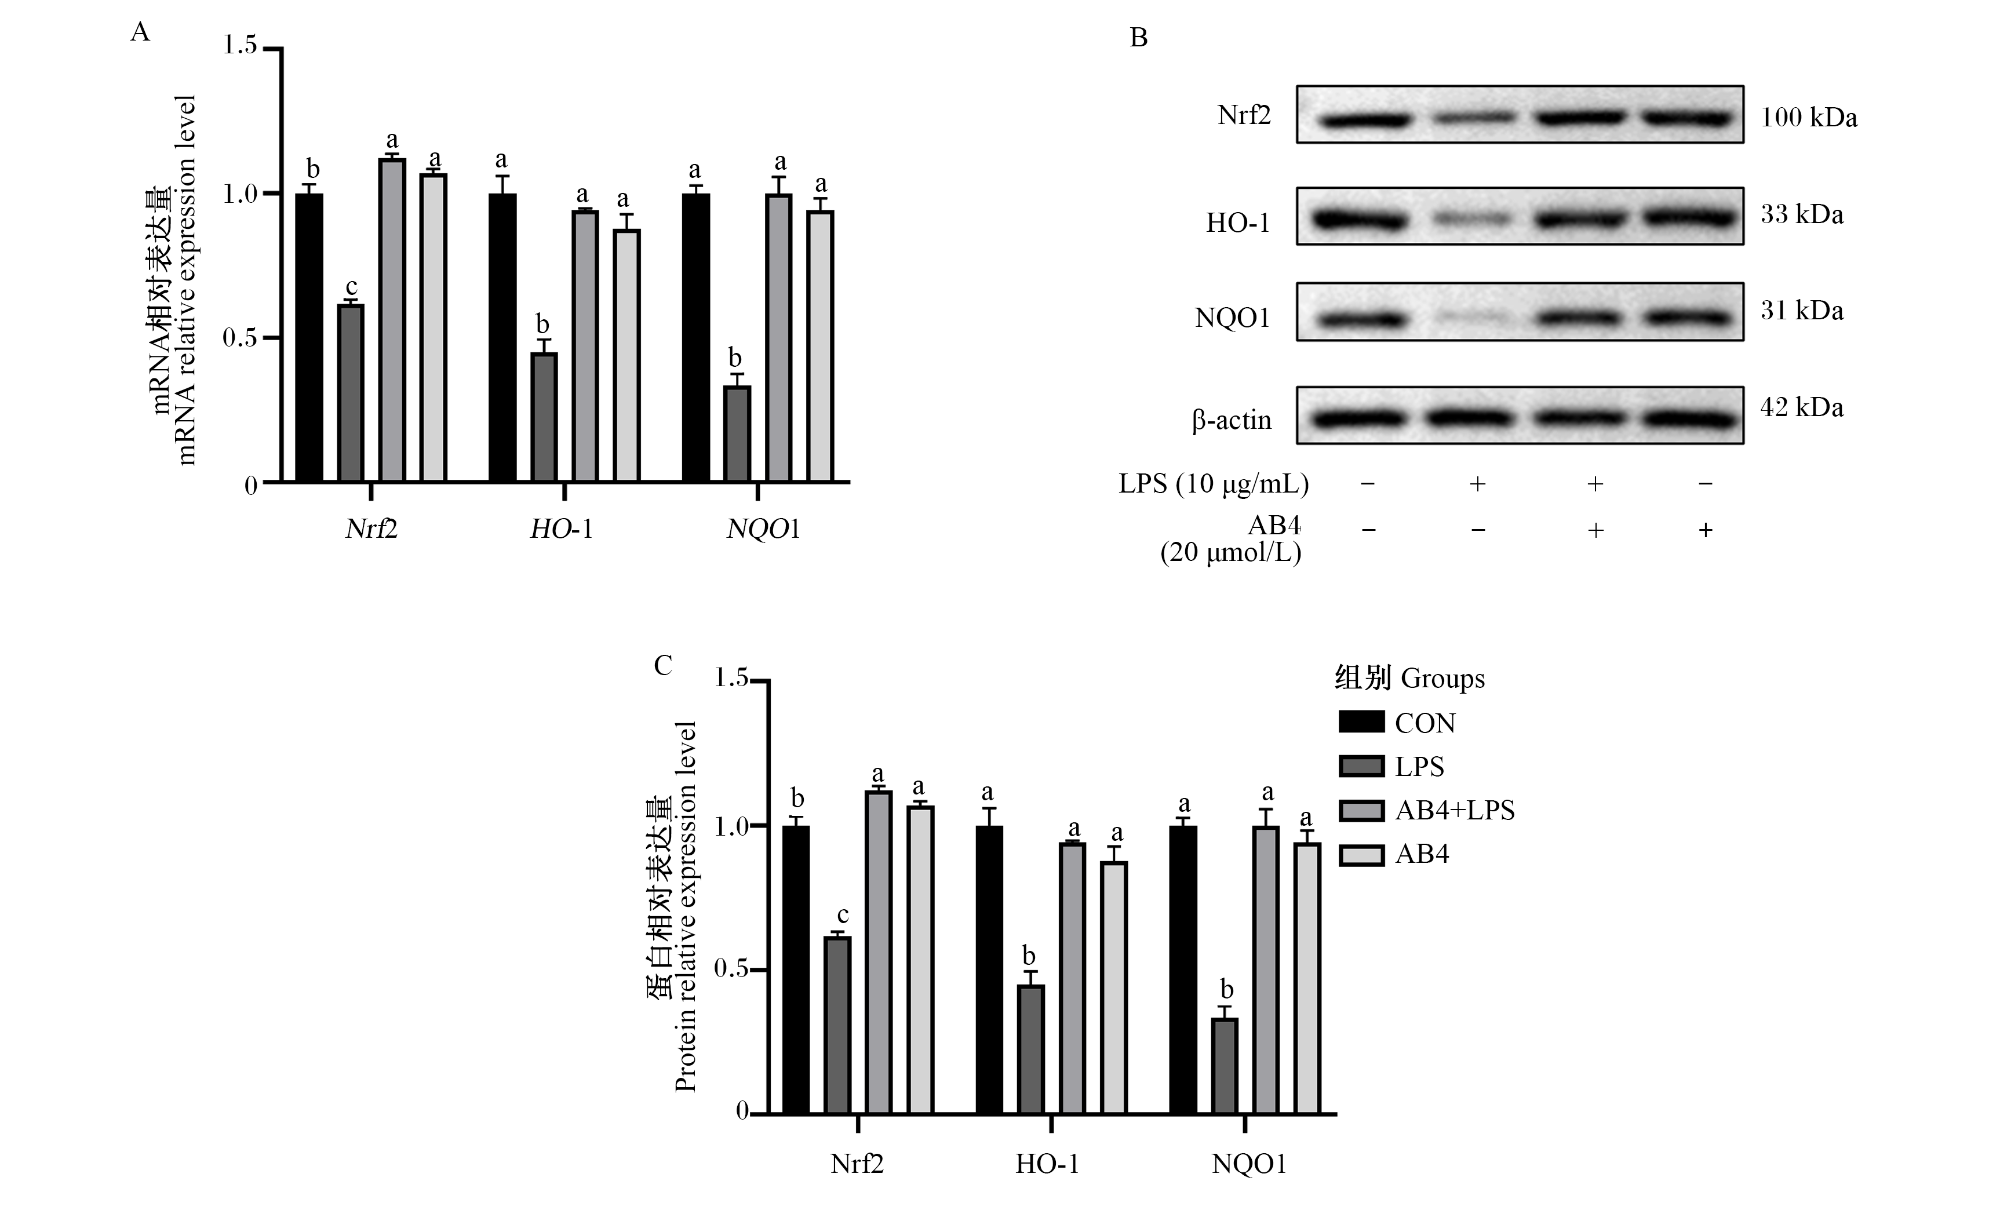
图5所示,与CON组相比,LPS组Nrf2、HO-1、NQO1的mRNA和蛋白相对表达量均显著降低(P<0.05);与LPS组相比,AB4+LPS组上述基因的mRNA和蛋白相对表达量均显著升高(P<0.05)。与CON组相比, AB4组中HO-1、NQO1的mRNA和蛋白相对表达量无显著差异(P>0.05),Nrf2的mRNA和蛋白相对表达量还显著升高(P<0.05),提示AB4对正常细胞的抗氧化通路无不良影响。
图5 AB4对MAC-T细胞中Nrf2通路中关键基因和蛋白表达的影响

Nrf2:核因子E2相关因子2 nuclear factor E2-related factor 2;HO-1:血红素氧合酶-1 heme oxygenase-1;NQO1:NAD(P)H:醌氧化还原酶1 NAD(P)H: quinone oxidoreductase 1;LPS:脂多糖 lipopolysaccharide;AB4:白头翁皂苷B4 anemoside B4;β-actin:β-肌动蛋白。下图同 the same as below。

Fig.5 Effects of AB4 on expression of key genes and proteins in Nrf2 pathway in MAC-T cells

2.3.2 AB4对MAC-T细胞中Nrf2核转位的影响

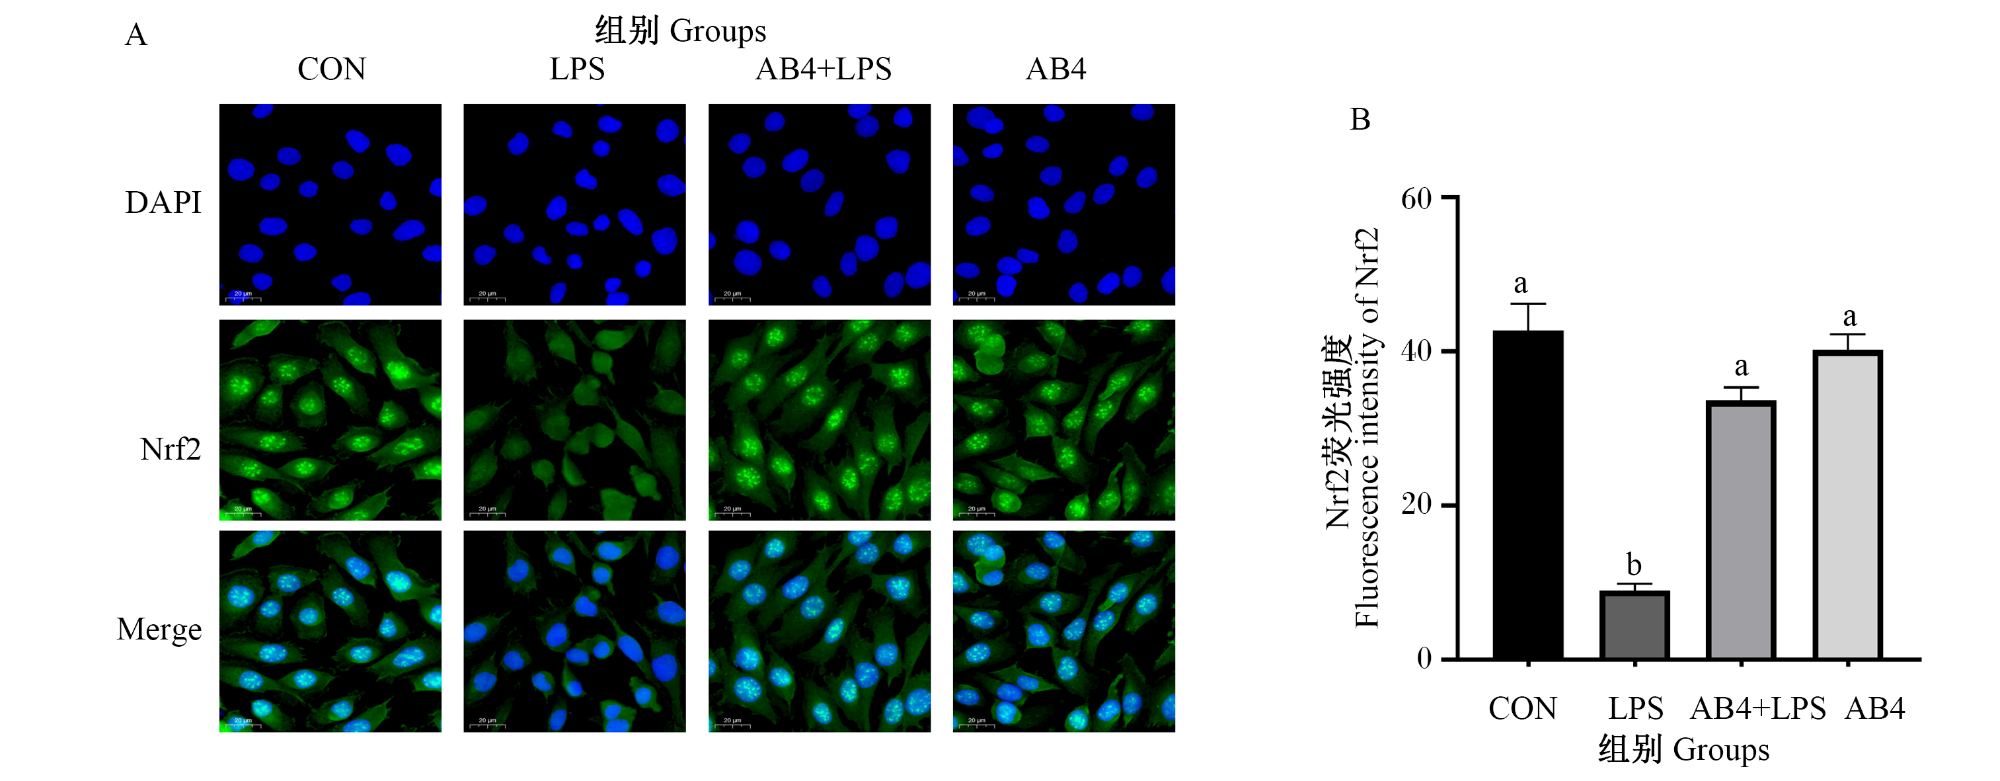
图6所示,与CON组相比,LPS组Nrf2荧光强度显著降低(P<0.05),说明Nrf2核转位受到抑制;与LPS组相比,AB4+LPS组Nrf2荧光强度显著升高(P<0.05),说明Nrf2核转位明显恢复。以上结果表明,AB4可激活MAC-T细胞中Nrf2通路。
图6 AB4对MAC-T细胞中Nrf2核转位的影响

DAPI:4’,6-二脒基-2-苯基吲哚 4’,6-diamidino-2-phenylindole;Merge:合并。下图同 the same as below。

Fig.6 Effects of AB4 on Nrf2 nuclear translocation in MAC-T cells

2.4 AB4对MAC-T细胞中NF-κB通路的影响

2.4.1 AB4对MAC-T细胞中NF-κB通路关键蛋白磷酸化水平及其下游炎症相关基因表达的影响
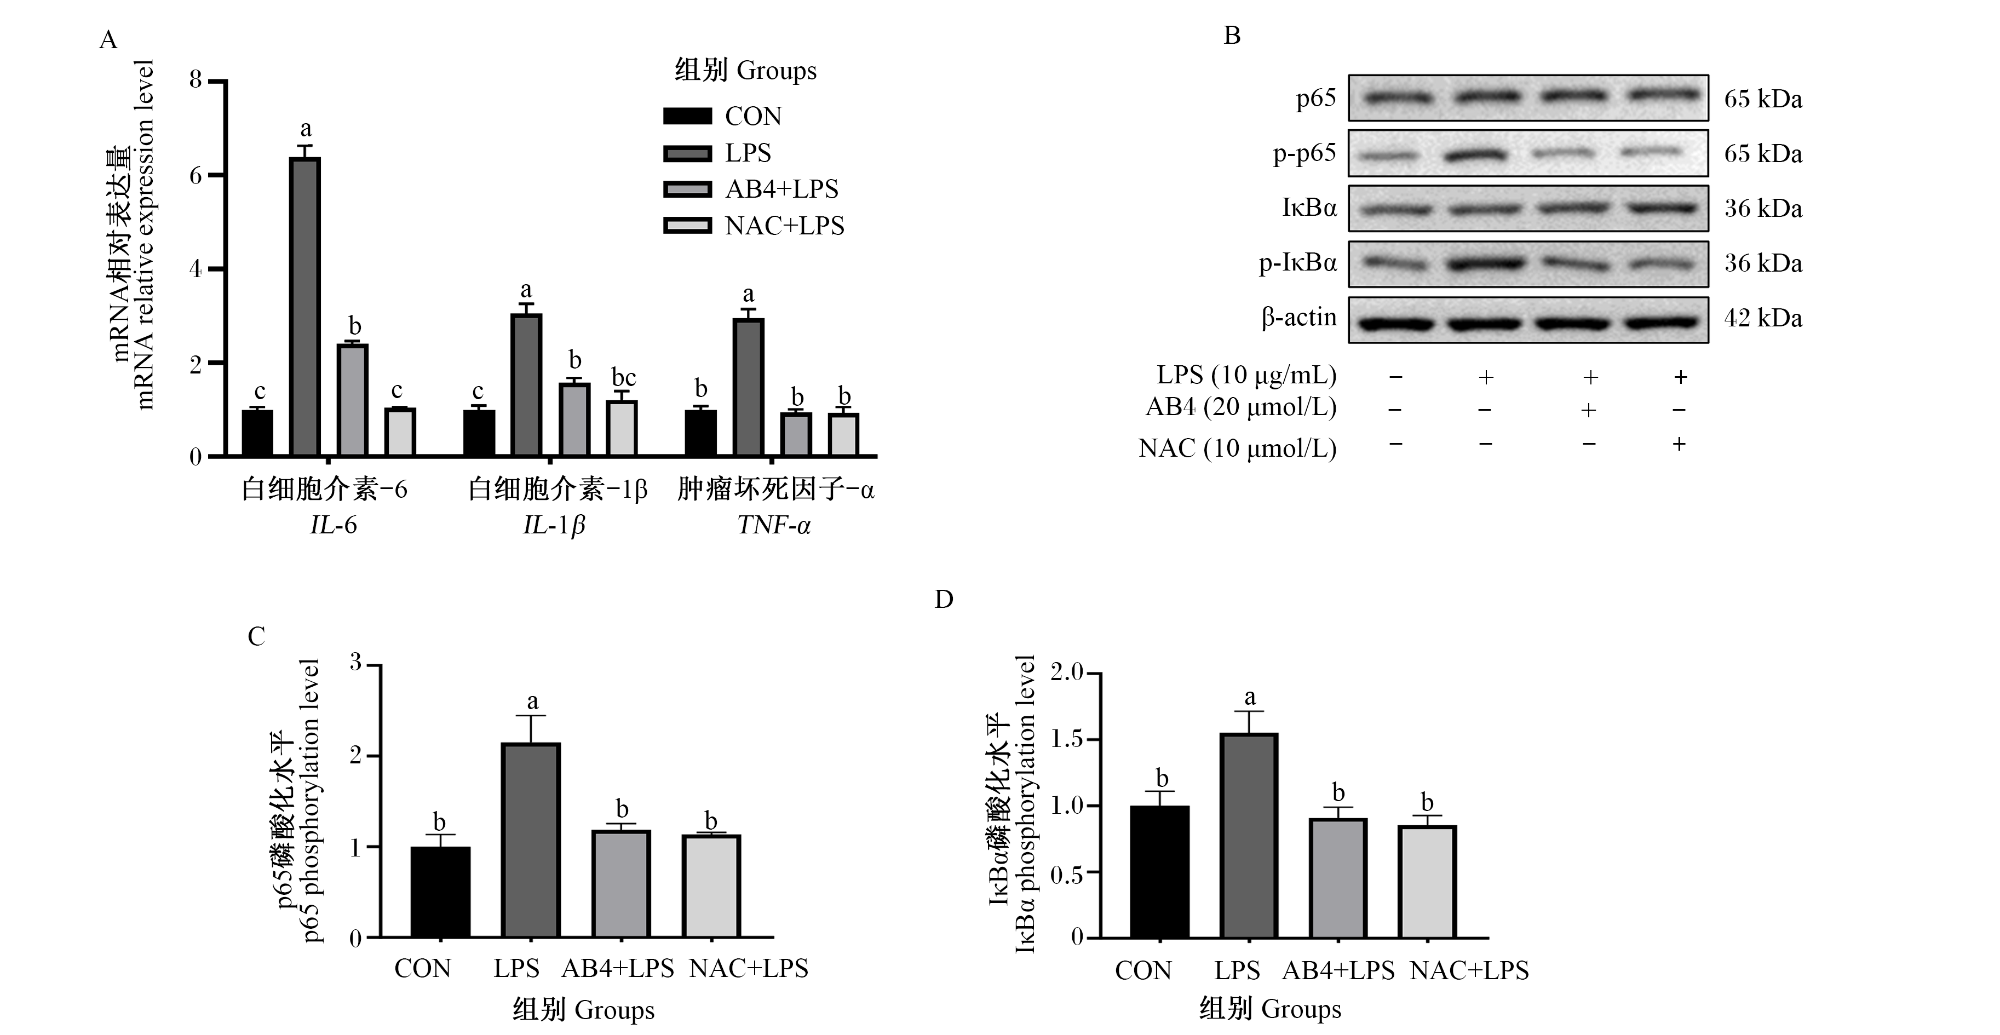
图7所示,与CON组相比,LPS组IL-6、IL-1βTNF-α的mRNA相对表达量、p65和IκBα磷酸化水平均显著升高(P<0.05);与LPS组相比,AB4+LPS组和NAC+LPS组IL-6、IL-1βTNF-α的mRNA相对表达量以及p65和IκBα磷酸化水平均显著降低(P<0.05)。
图7 AB4对MAC-T细胞中NF-κB通路关键蛋白磷酸化水平及其下游炎症相关基因表达的影响

p-p65:磷酸化p65 phosphorylated p65;IκBα:NF-κB抑制蛋白α NF-κB inhibitor alpha;p-IκBα:磷酸化NF-κB抑制蛋白α phosphorylated NF-κB inhibitor alpha。下图同 the same as below。

Fig.7 Effects of AB4 on phosphorylation levels of key proteins in NF-κB pathway and its downstream inflammatory gene expression in MAC-T cells

2.4.2 AB4对MAC-T细胞中p65核转位的影响

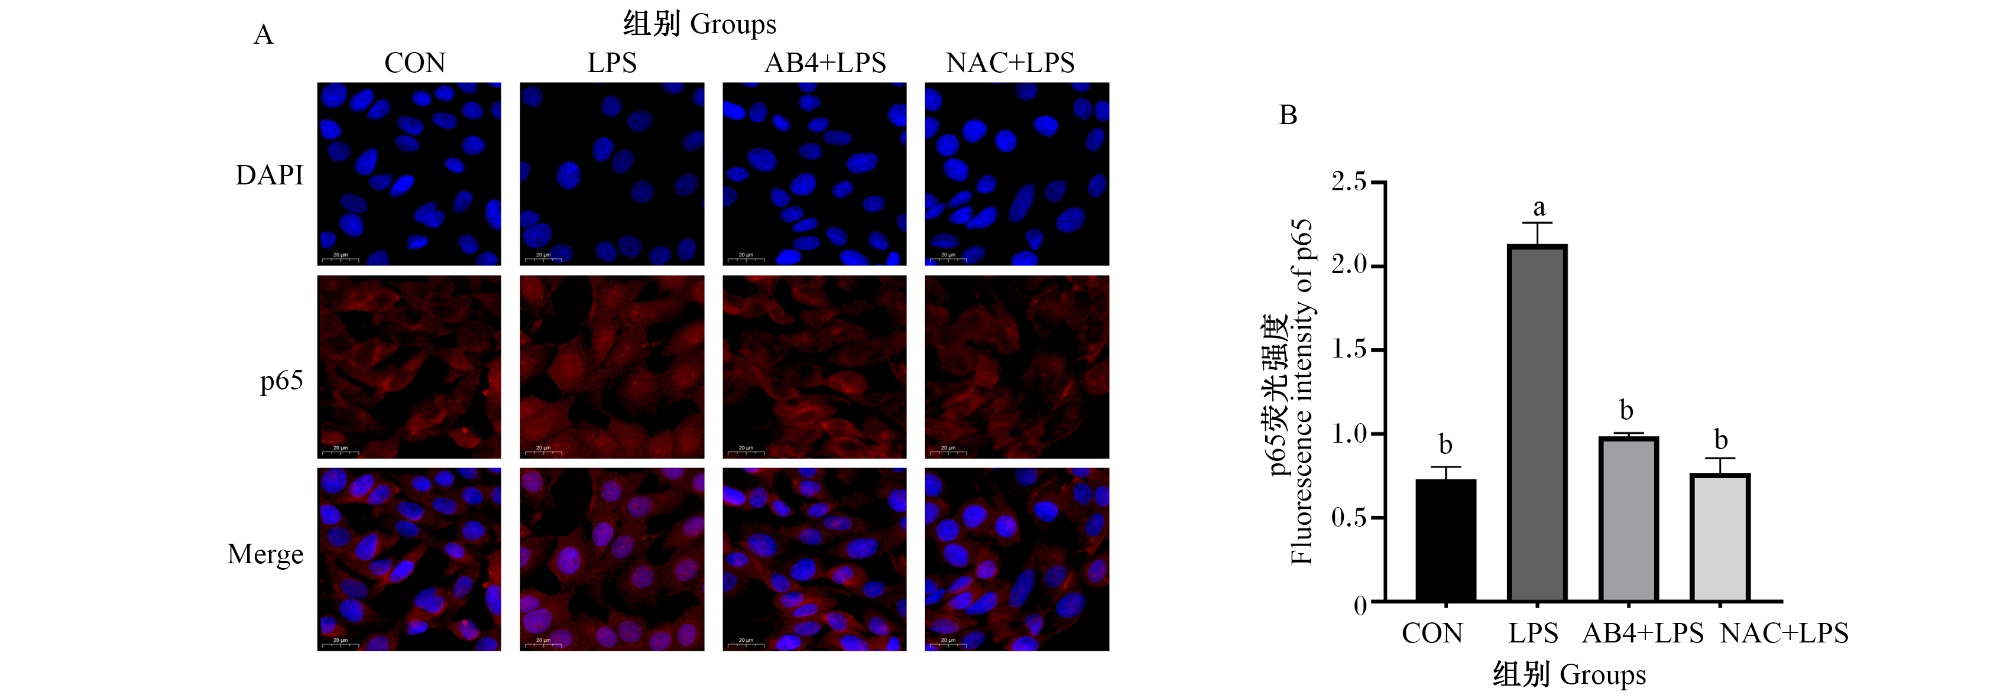
图8所示,与CON组相比,LPS组p65荧光强度显著升高(P<0.05),说明p65核转位明显增强;与LPS组相比,AB4+LPS组和NAC+LPS组p65荧光强度均显著降低(P<0.05),说明p65核转位受到明显抑制。
图8 AB4对MAC-T细胞中p65核转位的影响

Fig.8 Effects of AB4 on p65 nuclear translocation in MAC-T cells

2.4.3 抑制ROS对MAC-T细胞中炎症反应的影响

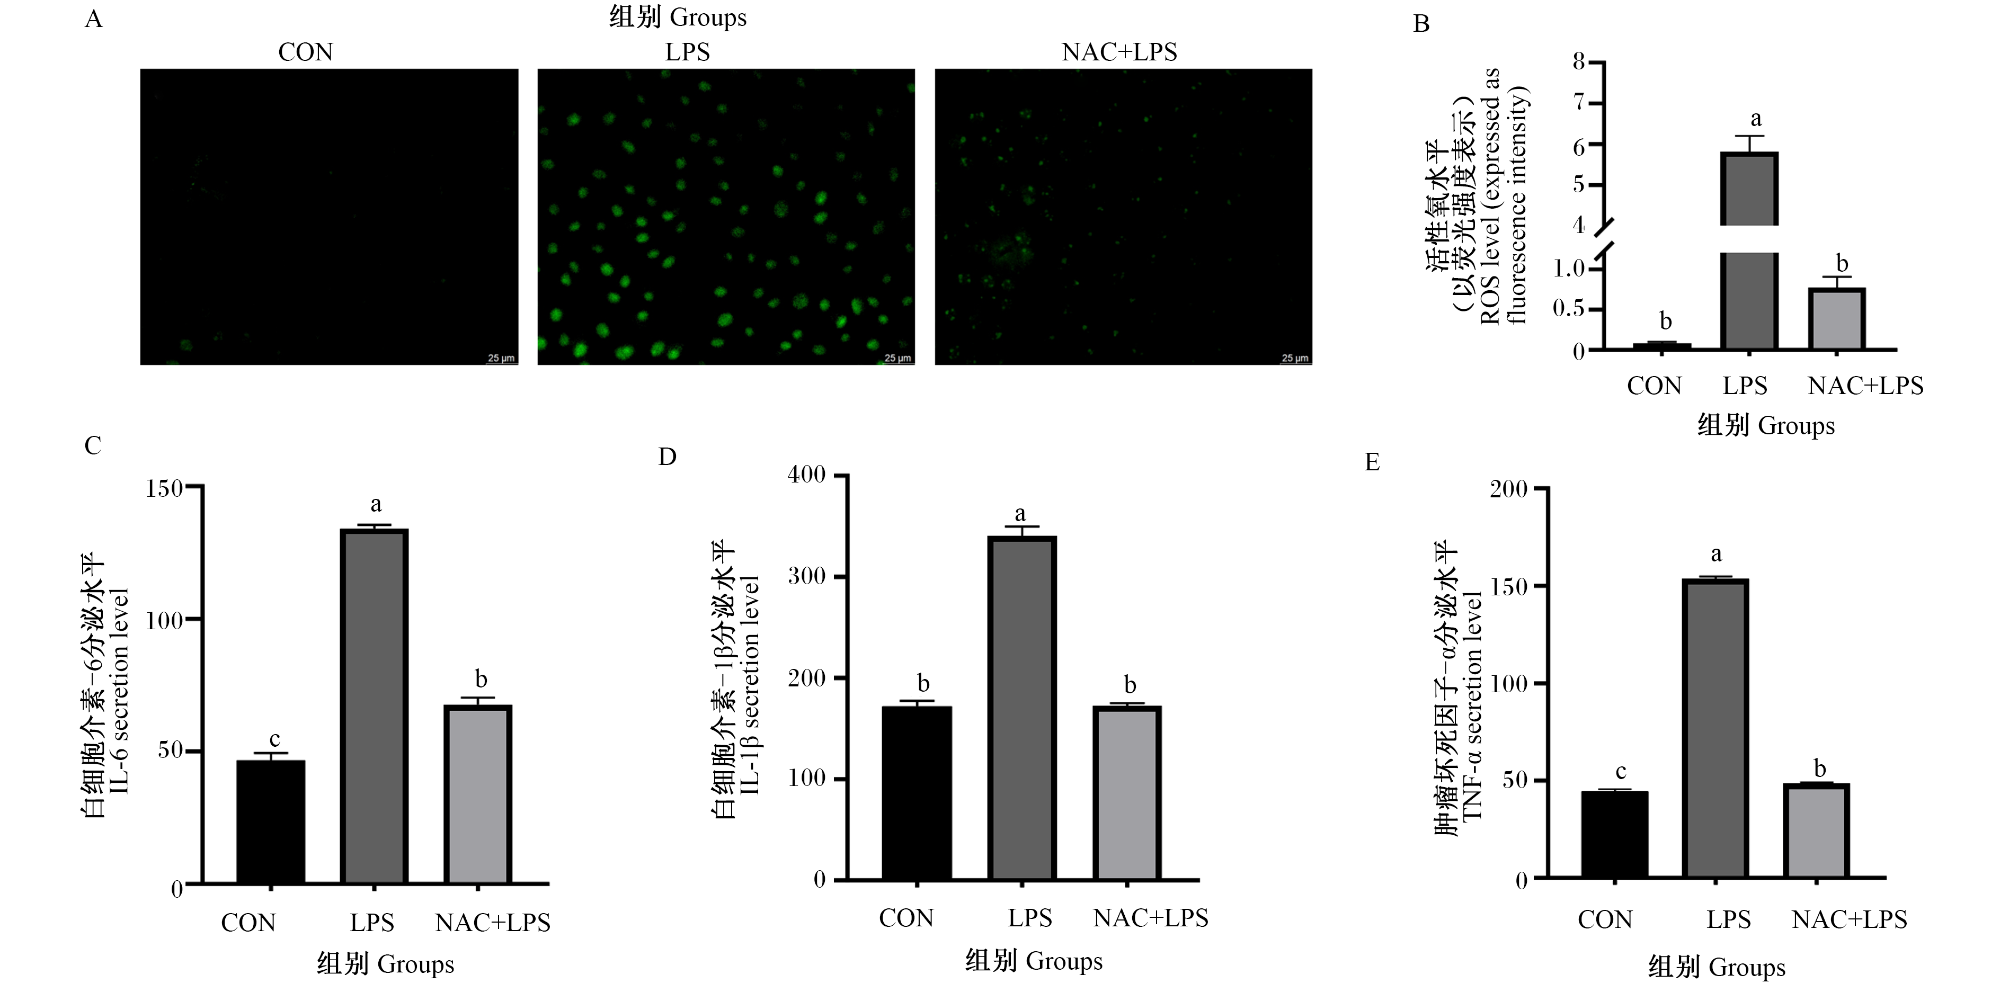
为探究抑制ROS对MAC-T细胞中炎症反应的影响,采用ROS抑制剂NAC处理细胞。如图9-A图9-B所示,与LPS组相比,NAC+LPS组ROS水平显著降低(P<0.05),表明NAC对ROS的抑制效果明显。如图9-C图9-D图9-E所示,与LPS组相比,NAC+LPS组IL-6、IL-1β和TNF-α分泌水平均显著降低(P<0.05)。上述结果提示,ROS是LPS诱导MAC-T细胞炎症反应的重要上游介质,抑制ROS可有效缓解MAC-T细胞中的炎症反应。
图9 NAC对MAC-T细胞中ROS水平和炎症因子分泌水平的影响

Fig.9 Effects of NAC on ROS level and secretion levels of inflammatory factors in MAC-T cells

2.5 抑制Nrf2通路对AB4抗氧化能力的影响

2.5.1 ML385对MAC-T细胞中Nrf2的mRNA、蛋白表达和核转位的影响

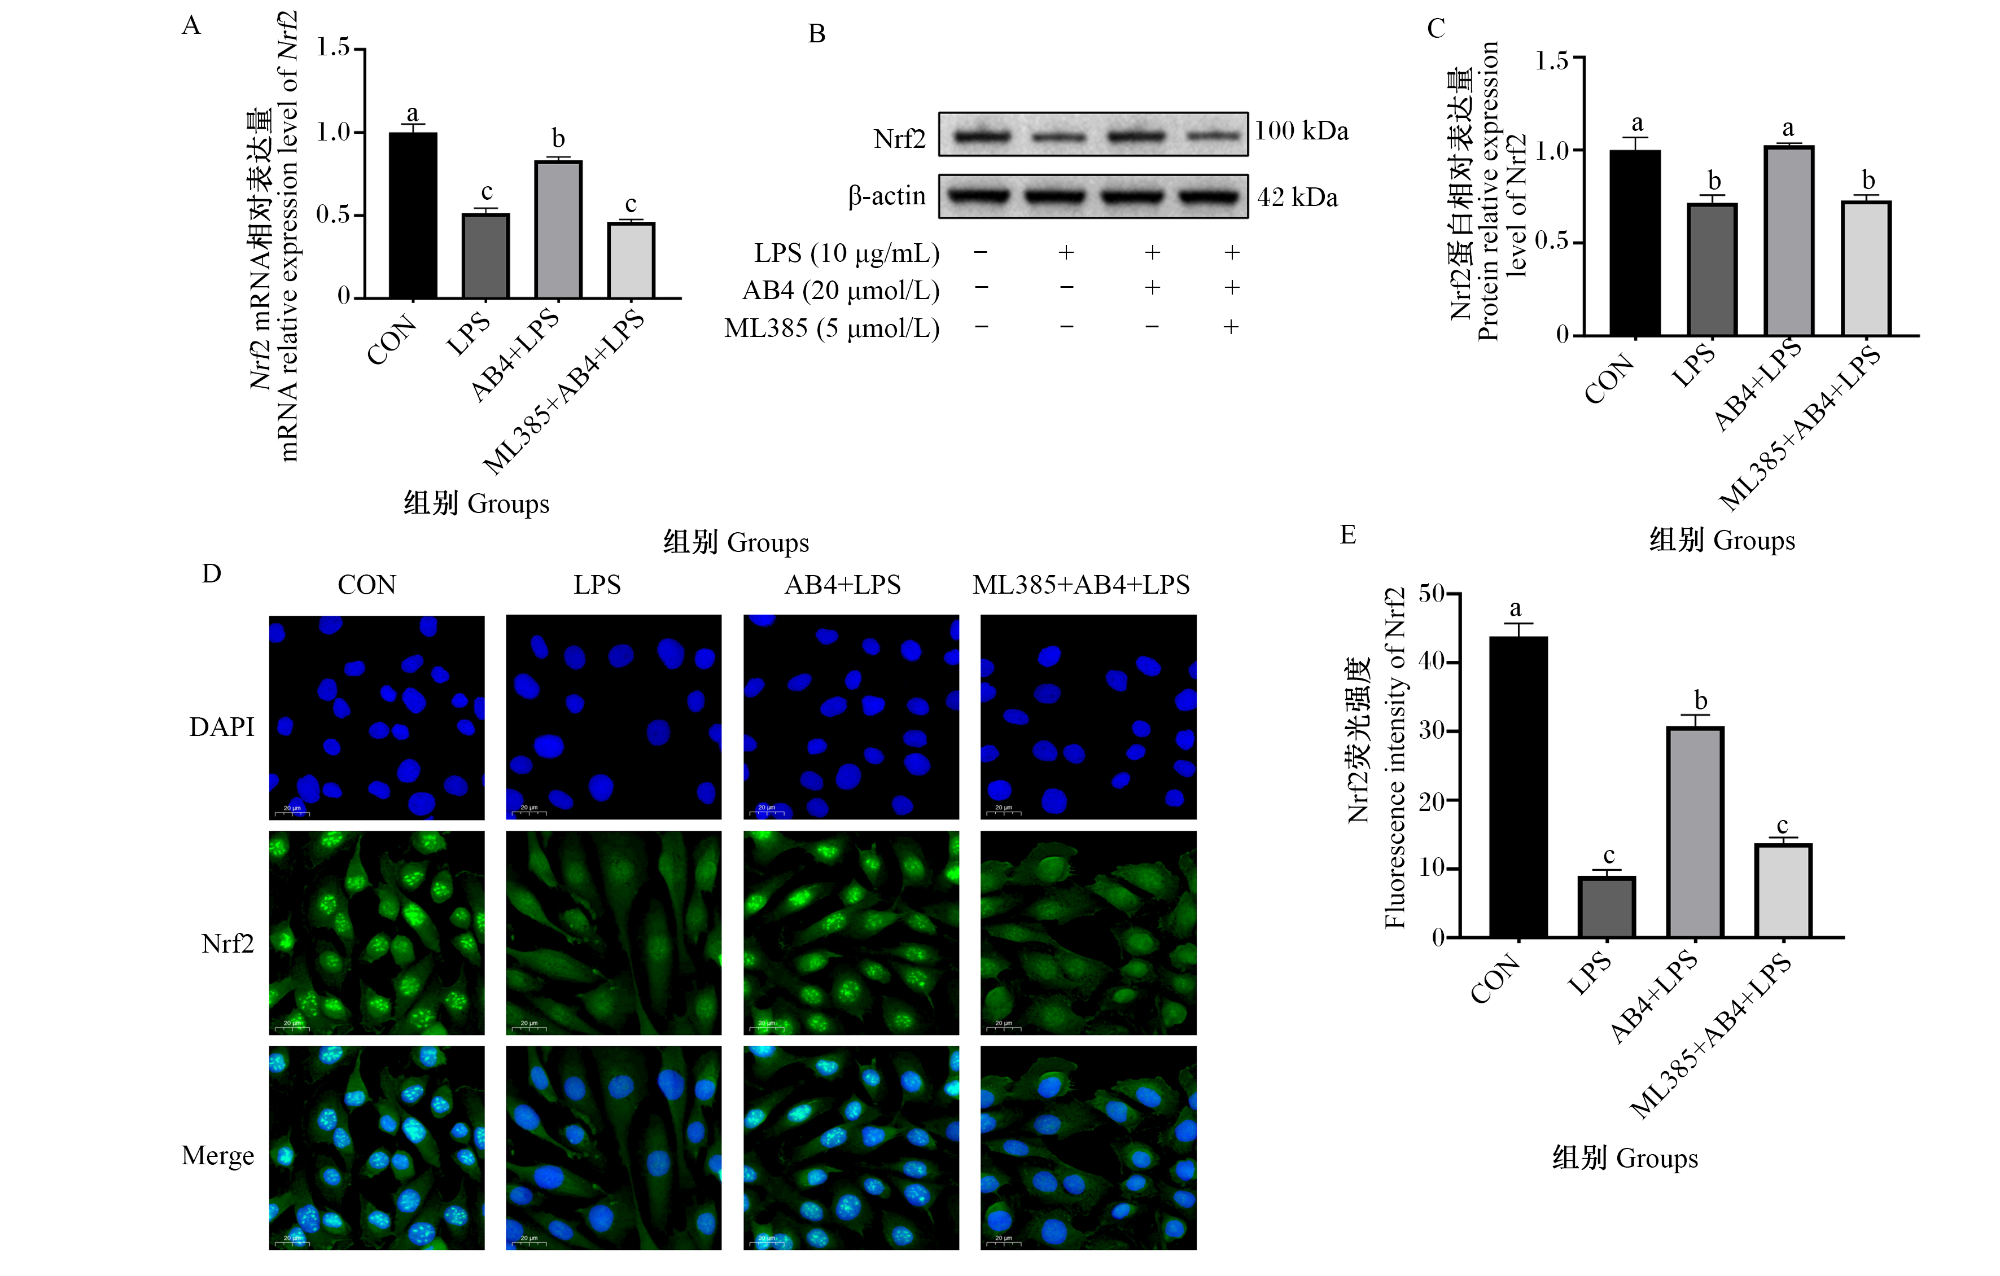
为探究Nrf2在AB4缓解LPS诱导的MAC-T细胞氧化应激和炎症反应中的作用机制,向MAC-T细胞中添加Nrf2特异性抑制剂ML385,并通过qRT-PCR、Western Blot和免疫荧光技术检测Nrf2的mRNA、蛋白表达和核转位情况,验证抑制效应。如图10所示,与AB4+LPS组相比,ML385+AB4+LPS组Nrf2的mRNA和蛋白相对表达量及荧光强度均显著降低(P<0.05)。上述结果表明,ML385可有效抑制AB4对Nrf2的激活作用。
图10 ML385对MAC-T细胞中Nrf2的mRNA、蛋白表达及核转位的影响

Fig.10 Effects of ML385 on Nrf2 mRNA and protein expression and nuclear translocation in MAC-T cells

2.5.2 ML385对MAC-T细胞中氧化应激指标的影响

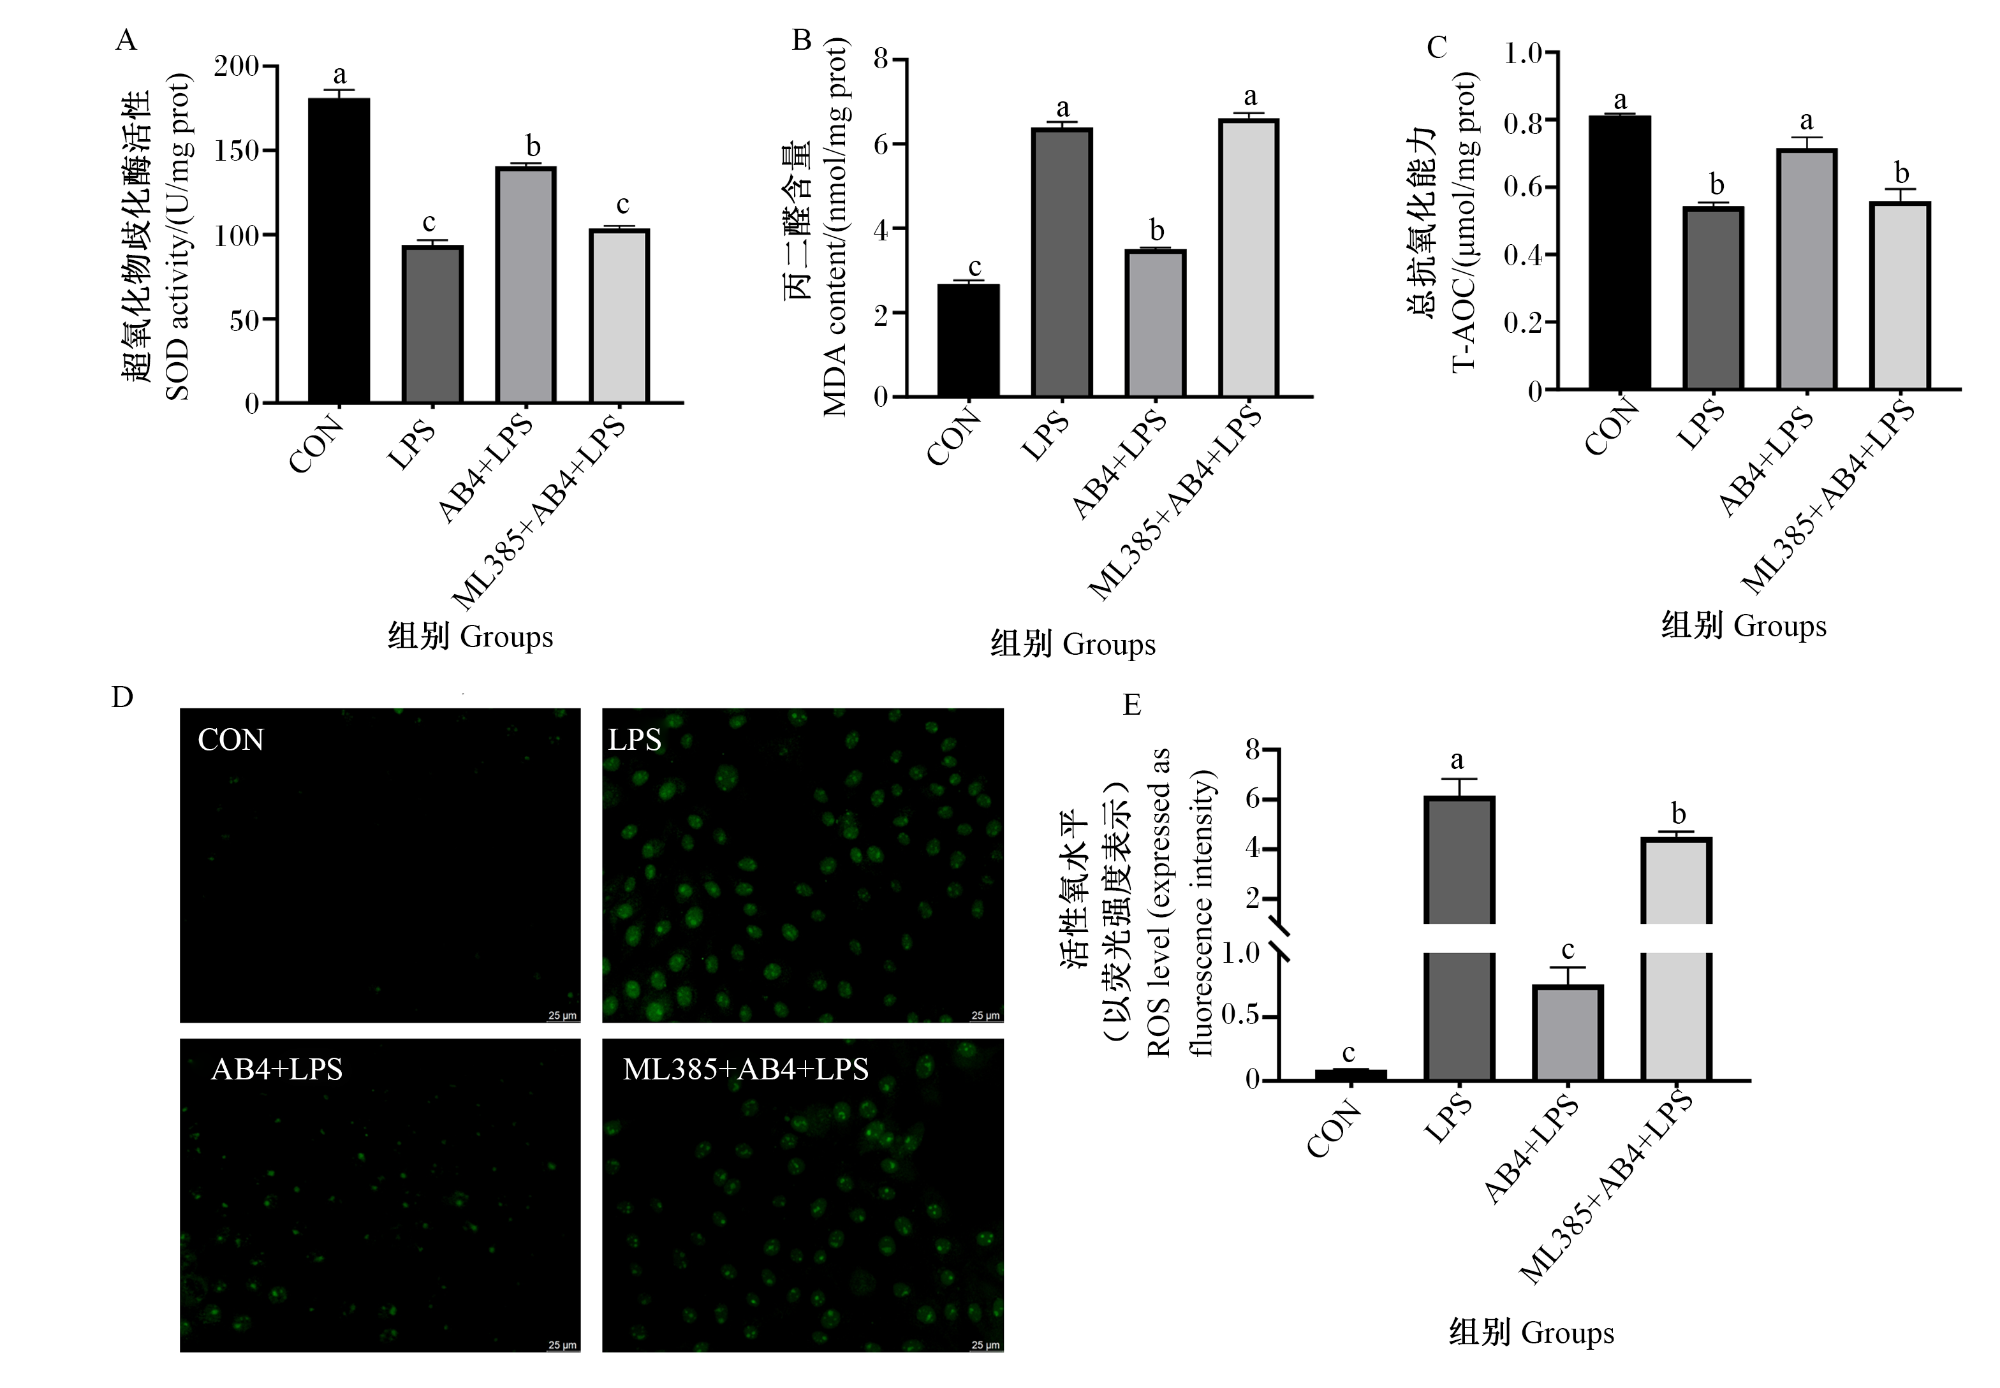
图11所示,与AB4+LPS组相比,ML385+AB4+LPS组MAC-T细胞中SOD活性和T-AOC均显著降低(P<0.05),MDA含量和ROS水平均显著升高(P<0.05)。以上结果表明,AB4可通过激活Nrf2缓解LPS诱导的MAC-T细胞氧化应激。
图11 ML385对MAC-T细胞中氧化应激指标的影响

Fig.11 Effects of ML385 on oxidative stress indicators in MAC-T cells

2.6 抑制Nrf2通路对AB4抗炎能力的影响

2.6.1 ML385对MAC-T细胞中NF-κB通路关键蛋白表达的影响

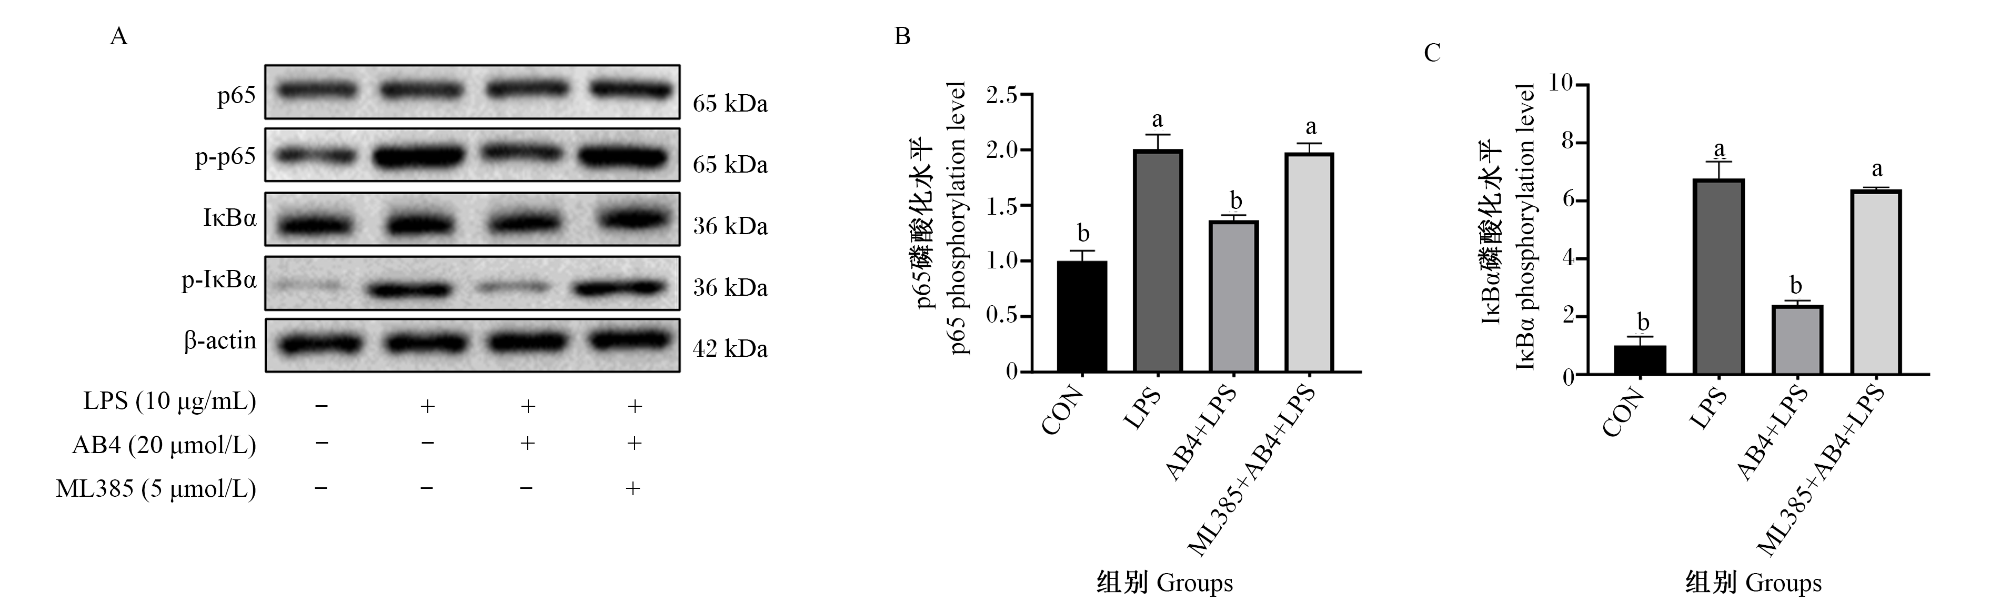
图12所示,与CON组相比,LPS组p65、IκBα磷酸化水平显著升高(P<0.05);与LPS组相比,AB4+LPS组p65、IκBα磷酸化水平显著降低(P<0.05);与AB4+LPS组相比,ML385+AB4+LPS组p65、IκBα磷酸化水平显著升高(P<0.05)。
图12 ML385对MAC-T细胞中NF-κB通路关键蛋白表达的影响

Fig.12 Effects of ML385 on expression of key proteins in NF-κB pathway of MAC-T cells

2.6.2 ML385对MAC-T细胞中p65核转位的影响

图13所示,与AB4+LPS组相比,ML385+AB4+LPS组p65荧光强度显著升高(P<0.05),说明p65核转位明显恢复。上述结果提示,抑制Nrf2可逆转AB4对NF-κB通路的抑制作用。
图13 ML385对MAC-T细胞中p65核转位的影响

Fig.13 Effects of ML385 on p65 nuclear translocation in MAC-T cells

2.6.3 ML385对MAC-T细胞中炎症相关基因和蛋白表达的影响

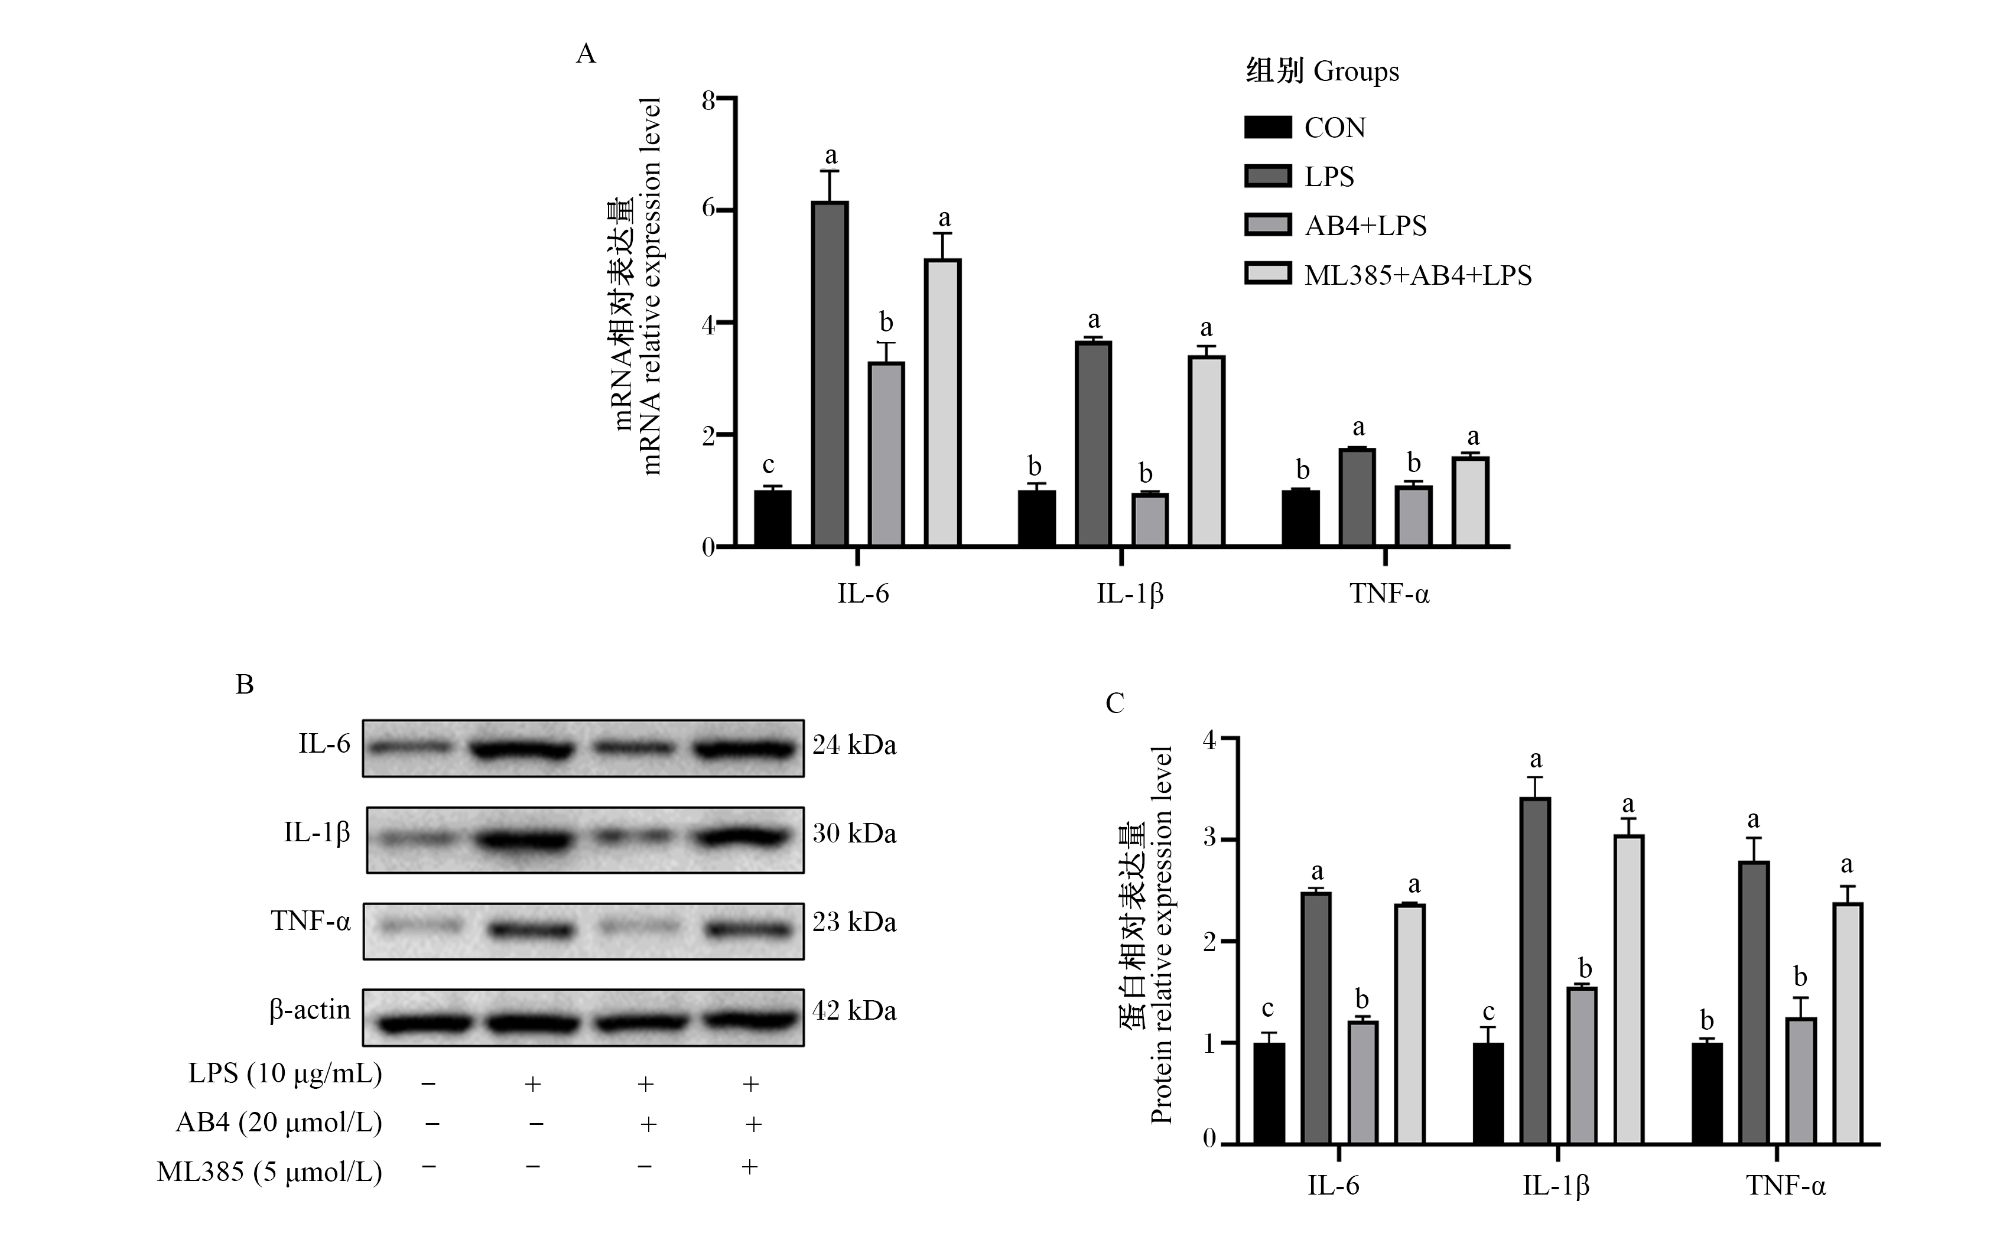
图14所示,与CON组相比,LPS组IL-6、IL-1βTNF-α的mRNA和蛋白相对表达量均显著升高(P<0.05);与LPS组相比,AB4+LPS组上述炎症因子的mRNA和蛋白相对表达量均显著降低(P<0.05);加入Nrf2抑制剂ML385后,ML385+AB4+LPS组上述炎症因子的mRNA和蛋白相对表达量较AB4+LPS组均显著升高(P<0.05)。以上结果表明,抑制Nrf2可显著逆转AB4对炎症因子表达的抑制作用,提示AB4缓解LPS诱导的炎症反应可能依赖于Nrf2通路的激活。
图14 ML385对MAC-T细胞中炎症相关基因和蛋白表达的影响

IL-6:白细胞介素-6 interleukin-6;IL-1β:白细胞介素-1β interleukin-1β;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α。

Fig.14 Effects of ML385 on expression of inflammation-related genes and proteins in MAC-T cells

3 讨论

乳腺炎可造成产奶量下降和乳品质降低,给牧场带来巨大经济损失[22]。本课题组前期研究发现,AB4可有效治疗临床型奶牛乳腺炎[19];同时,该成分还可调节脂质代谢并提高补体水平[23-24]。bMECs作为主要的泌乳细胞,在奶牛泌乳期内始终处于高代谢状态,极易诱发氧化应激[25]。在大肠杆菌等微生物入侵乳腺后会释放LPS,LPS经TLR4通路传导刺激bMECs产生IL-6、IL-8和TNF-α等炎症因子和ROS,进而引起bMECs氧化应激和炎症反应[26]。因此,缓解bMECs氧化应激和炎症反应对于治疗奶牛乳腺炎至关重要。
ROS是细胞内含氧活性物质的总称,其稳态水平反映细胞的氧化还原状态。细胞内ROS的清除依赖于酶抗氧化系统和非酶抗氧化系统,T-AOC能够综合反映细胞整体的抗氧化能力[27]。生理条件下,ROS的产生与清除处于动态平衡;当ROS产生超出抗氧化系统的清除能力时,过量的ROS将诱发氧化应激,攻击生物膜中的不饱和脂肪酸,生成MDA等脂质过氧化产物,进而造成细胞氧化损伤[28]。本研究中,经LPS处理后MAC-T细胞活力、SOD活性和T-AOC显著降低,MDA含量和ROS水平显著升高,表明LPS可成功诱导细胞氧化应激模型;而AB4干预可显著逆转上述指标的变化,提示AB4具有缓解LPS诱导的细胞氧化应激的作用,该结果与He等[13]的报道一致。上述结果表明,AB4可通过增强抗氧化酶活性提高ROS清除能力,并有效缓解脂质过氧化,进而逆转LPS诱导的MAC-T细胞氧化应激。Nrf2作为机体抗氧化系统的核心转录因子,其激活可促进下游抗氧化基因HO-1和NQO1表达,从而有效缓解氧化应激[29]。已有研究证明,AB4能够通过激活Nrf2通路提高SOD活性,缓解胶原诱导的关节炎小鼠氧化应激[17]
本研究对AB4处理后MAC-T细胞中Nrf2通路相关指标进行了检测,并通过添加Nrf2特异性抑制剂ML385验证了Nrf2通路激活与AB4抗氧化作用间的联系。结果显示,与LPS组相比,AB4处理显著提高了Nrf2及其下游基因HO-1和NQO1的mRNA和蛋白相对表达量,并促进Nrf2核转位;添加ML385后,AB4介导的Nrf2核转位和下游抗氧化基因的表达被显著抑制,并伴随SOD活性和T-AOC降低,细胞内ROS增多。上述结果表明,AB4的抗氧化作用部分通过激活Nrf2通路实现。
NF-κB是先天性和适应性免疫反应的重要调节因子,广泛参与细胞增殖、细胞凋亡和炎症相关基因的表达,在多种生理和病理进程中发挥重要作用;静息状态下,NF-κB与IκBα结合以非活性形式存在于细胞质中,当IκBα发生磷酸化后,可导致NF-κB p65亚基磷酸化及核转位,进而启动下游炎症因子的分泌与表达[30]。因此,抑制IκBα和p65磷酸化可有效阻断NF-κB通路激活[31]。过往研究显示,AB4对于炎症因子分泌及炎症通路激活具有显著的抑制作用[17-18]。本研究中,AB4可呈浓度依赖性降低LPS诱导的MAC-T细胞中促炎因子IL-6、IL-1β、TNF-α分泌,同时可降低上述炎症因子的mRNA相对表达量,并抑制p65、IκBα磷酸化及p65核转位。上述结果表明,AB4可有效缓解LPS诱导的MAC-T细胞炎症反应,同时抑制NF-κB通路的激活。
氧化应激和炎症反应在炎症性疾病中通常同步发生,二者通过ROS信号传导相互作用[32]。在炎症微环境下,ROS可通过激活NF-κB通路诱导炎症加剧,其具体机制与ROS介导的IκBα蛋白修饰有关[33]。因此,清除ROS已被作为治疗多种炎症性疾病的有效方案[34-35]。本研究中,在LPS诱导的MAC-T细胞中添加ROS抑制剂NAC后,NF-κB通路激活被抑制,同时炎症因子分泌减少。据此推测,AB4对LPS诱导的细胞炎症反应的抑制效果可能由Nrf2介导。为验证该猜想,本研究利用Nrf2抑制剂ML385开展回补试验,检测MAC-T细胞中NF-κB通路和炎症相关指标的变化。结果发现,添加ML385后,AB4对NF-κB通路的抑制作用被部分逆转,炎症因子IL-6、IL-1β和TNF-α的分泌水平升高,AB4抗炎效果减弱。以上结果提示,AB4缓解LPS诱导的MAC-T细胞炎症反应,至少部分是依靠激活Nrf2通路实现的。

4 结论

AB4可激活Nrf2通路,上调其下游基因(HO-1和NQO1)的表达,进而增强SOD活性和T-AOC,降低MDA含量和ROS水平,缓解LPS诱导的MAC-T细胞氧化应激;同时,AB4可抑制IκBα和p65的磷酸化,阻断NF-κB通路激活,减少IL-6、IL-1β和TNF-α等炎症因子的分泌与表达,减轻LPS诱导的MAC-T细胞炎症反应。在1~20 μmol/L浓度范围内,AB4的抗氧化及抗炎作用呈浓度依赖性。综合分析上述结果,AB4的作用机制可能与其激活Nrf2通路、促进ROS清除,进而负向调控NF-κB通路活化有关。
[1]
SHANGRAW E M, MCFADDEN T B. Graduate student literature review:systemic mediators of inflammation during mastitis and the search for mechanisms underlying impaired lactation[J]. Journal of Dairy Science, 2022, 105(3):2718-2727.

DOI

[2]
FU Y H, ZHOU E S, LIU Z C, et al. Staphylococcus aureus and Escherichia coli elicit different innate immune responses from bovine mammary epithelial cells[J]. Veterinary Immunology and Immunopathology, 2013, 155(4):245-252.

DOI

[3]
GILBERT F B, CUNHA P, JENSEN K, et al. Differential response of bovine mammary epithelial cells to Staphylococcus aureus or Escherichia coli agonists of the innate immune system[J]. Veterinary Research, 2013, 44(1):40.

DOI

[4]
ZHOU M, BARKEMA H W, GAO J, et al. MicroRNA miR-223 modulates NLRP3 and Keap1,mitigating lipopolysaccharide-induced inflammation and oxidative stress in bovine mammary epithelial cells and murine mammary glands[J]. Veterinary Research, 2023, 54(1):78.

DOI

[5]
WELLNITZ O, BRUCKMAIER R M. Invited review:the role of the blood-milk barrier and its manipulation for the efficacy of the mammary immune response and milk production[J]. Journal of Dairy Science, 2021, 104(6):6376-6388.

DOI

[6]
SUN M Y, XU D W, LIU D F, et al. Stigmasterol from Prunella vulgaris L. alleviates LPS-induced mammary gland injury by inhibiting inflammation and ferroptosis[J]. Phytomedicine, 2025, 137:156362.

DOI

[7]
GUO W J, FU S P, LIU J X, et al. Editorial:the mechanism of metabolic immune microenvironment,inflammation and blood milk barrier in mastitis[J]. Frontiers in Immunology, 2023, 14:1213826.

DOI

[8]
YANG Y, WU M Y, ZHANG X L, et al. Early socialization triggered ROS-mediated activation of canonical NF-κB pathway leading to inflammation of spleen in suckling piglets[J]. Agriculture, 2024, 14(7):992.

DOI

[9]
HUANG Q, LIU J S, PENG C, et al. Hesperidin ameliorates H2O2-induced bovine mammary epithelial cell oxidative stress via the Nrf2 signaling pathway[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):57.

DOI

[10]
HUANG J C, YUE Z P, YU H F, et al. TAZ ameliorates the microglia-mediated inflammatory response via the Nrf2-ROS-NF-κB pathway[J]. Molecular Therapy Nucleic Acids, 2022, 28:435-449.

DOI

[11]
EL-SAYED A, KAMEL M. Bovine mastitis prevention and control in the post-antibiotic era[J]. Tropical Animal Health and Production, 2021, 53(2):236.

DOI

[12]
FENG W, ZHANG Y, ZHANG Y W, et al. Anemoside B4 ameliorates dextran sulfate sodium (DSS)-induced colitis through inhibiting NLRP3 inflammasome and modulating gut microbiota[J]. European Journal of Pharmacology, 2024, 963:176164.

DOI

[13]
HE L, ZHANG Y, KANG N X, et al. Anemoside B4 attenuates nephrotoxicity of cisplatin without reducing anti-tumor activity of cisplatin[J]. Phytomedicine, 2019, 56:136-146.

DOI PMID

[14]
XIAO M Y, LUO R H, LIANG Q H, et al. Anemoside B4 inhibits SARS-CoV-2 replication in vitro and in vivo[J]. Chinese Herbal Medicines, 2024, 16(1):106-112.

DOI

[15]
SHEN L H, LUO H, FAN L, et al. Exploration of the immuno-adjuvant effect and mechanism of anemoside B4 through network pharmacology and experiment verification[J]. Phytomedicine, 2024, 124:155302.

DOI

[16]
HAN Q, DENG L R, ZOU M, et al. Anemoside B4 protects against chronic relapsing colitis in mice by modulating inflammatory response,colonic transcriptome and the gut microbiota[J]. Phytomedicine, 2022, 106:154416.

DOI

[17]
GUO C L, YUE Y F, WANG B J, et al. Anemoside B4 alleviates arthritis pain via suppressing ferroptosis-mediated inflammation[J]. Journal of Cellular and Molecular Medicine, 2024, 28(4):e18136.

DOI

[18]
HE J, YUAN R Y K, CUI X L, et al. Anemoside B4 protects against Klebsiella pneumoniae- and influenza virus FM1-induced pneumonia via the TLR4/Myd88 signaling pathway in mice[J]. Chinese Medicine, 2020, 15(1):68.

DOI

[19]
钱柏霖, 尤留超, 张钺, 等. 白头翁皂苷B4对临床型乳房炎奶牛乳汁体细胞、酶、炎性和抗氧化因子影响[J]. 江西农业大学学报, 2021, 43(4):873-880.

QIAN B L, YOU L C, ZHANG Y, et al. Effects of Pulsatilla saponin B4 on somatic cell counts,enzymes,inflammatory and antioxidant factors in milk of dairy cows with clinical mastitis[J]. Acta Agriculturae Universitatis Jiangxiensis, 2021, 43(4):873-880. (in Chinese)

[20]
沈留红, 钱柏霖, 尤留超, 等. 白头翁皂苷B4对临床型奶牛乳房炎疗效和血清炎性因子、免疫因子的影响[J]. 浙江农业学报, 2021, 33(7):1184-1191.

DOI

SHEN L H, QIAN B L, YOU L C, et al. Effect of Pulsatilla saponin B4 on treatment efficiency and serum inflammatory and immune factors of dairy cows with clinical mastitis[J]. Acta Agriculturae Zhejiangensis, 2021, 33(7):1184-1191. (in Chinese)

[21]
汪培嘉, 严静, 王银龙, 等. 白头翁皂苷注射液对奶牛隐性乳房炎的临床治疗效果[J]. 中国兽医学报, 2022, 42(10):2064-2070.

WANG P J, YAN J, WANG Y L, et al. Clinical effect of Pulsatilla saponin injection for treatment of dairy cows with subclinical mastitis[J]. Chinese Journal of Veterinary Science, 2022, 42(10):2064-2070. (in Chinese)

[22]
RUEGG P L. A 100-year review:mastitis detection,management,and prevention[J]. Journal of Dairy Science, 2017, 100(12):10381-10397.

DOI

[23]
SHEN L H, SHEN Y, ZHANG Y, et al. Effects of anemoside B4 on plasma metabolites in cows with clinical mastitis[J]. Veterinary Sciences, 2023, 10(7):437.

DOI

[24]
ZHANG Z R, ZHAO Y Q, SU Z T, et al. Proteomics analysis reveals the mechanism of anemoside B4 in treating clinical mastitis in dairy cows[J]. Italian Journal of Animal Science, 2025, 24(1):78-88.

DOI

[25]
FAVORIT V, HOOD W R, KAVAZIS A N, et al. Graduate student literature review:mitochondrial adaptations across lactation and their molecular regulation in dairy cattle[J]. Journal of Dairy Science, 2021, 104(9):10415-10425.

DOI

[26]
DAI H, COLEMAN D N, HU L, et al. Methionine and arginine supplementation alter inflammatory and oxidative stress responses during lipopolysaccharide challenge in bovine mammary epithelial cells in vitro[J]. Journal of Dairy Science, 2020, 103(1):676-689.

DOI PMID

[27]
HUCHZERMEYER B, MENGHANI E, KHARDIA P, et al. Metabolic pathway of natural antioxidants,antioxidant enzymes and ROS providence[J]. Antioxidants, 2022, 11(4):761.

DOI

[28]
EZRATY B, GENNARIS A, BARRAS F, et al. Oxidative stress,protein damage and repair in bacteria[J]. Nature Reviews Microbiology, 2017, 15(7):385-396.

DOI

[29]
HUANG Q, SHAN Q, MA F T, et al. Chlorogenic acid mitigates heat stress-induced oxidative damage in bovine mammary epithelial cells by inhibiting NF-κB-mediated NLRP3 inflammasome activation via upregulating the Nrf2 signaling pathway[J]. International Journal of Biological Macromolecules, 2025, 301:140133.

DOI

[30]
ZHAO M, HOU J, ZHENG S C, et al. Peucedanum praeruptorum Dunn polysaccharides regulate macrophage inflammatory response through TLR2/TLR4-mediated MAPK and NF-κB pathways[J]. Biomedicine & Pharmacotherapy, 2022, 152:113258.

DOI

[31]
POMERANTZ J L, BALTIMORE D. Two pathways to NF-kappaB[J]. Molecular Cell, 2002, 10(4):693-695.

PMID

[32]
ZHAO J N, GUO F F, HOU L, et al. Electron transfer-based antioxidant nanozymes:emerging therapeutics for inflammatory diseases[J]. Journal of Controlled Release, 2023, 355:273-291.

DOI

[33]
MORGAN M J, LIU Z G. Crosstalk of reactive oxygen species and NF-κB signaling[J]. Cell Research, 2011, 21(1):103-115.

DOI PMID

[34]
LIU J, SHI L, WANG Y, et al. Ruthenium-based metal-organic framework with reactive oxygen and nitrogen species scavenging activities for alleviating inflammation diseases[J]. Nano Today, 2022, 47:101627.

DOI

[35]
LI C W, LI L L, CHEN S, et al. Antioxidant nanotherapies for the treatment of inflammatory diseases[J]. Frontiers in Bioengineering and Biotechnology, 2020, 8:200.

DOI

文章导航

/