研究论文

通过连续腹腔注射敌草快建立肉鸡慢性氧化应激模型

  • 赵紫茵 , 1 ,
  • 刘博 1 ,
  • 高利晓 2 ,
  • 张佳琳 1 ,
  • 李硕 1 ,
  • 魏梦茹 1 ,
  • 刘树栋 , 1, *
展开
  • 1 河北农业大学动物科技学院, 保定 071000
  • 2 晋州市农业综合行政执法大队, 晋州 052260
* 刘树栋,副教授,硕士生导师,E-mail:

赵紫茵(2001—),女,河北定州人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 菅景颖

收稿日期: 2026-01-20

  网络出版日期: 2026-09-12

基金资助

河北省自然科学基金青年科学基金项目(C2024204217)

Establishment of a Chronic Oxidative Stress Model in Broilers by Continuous Intraperitoneal Injection of Diquat

  • ZHAO Ziyin , 1 ,
  • LIU Bo 1 ,
  • GAO Lixiao 2 ,
  • ZHANG Jialin 1 ,
  • LI Shuo 1 ,
  • WEI Mengru 1 ,
  • LIU Shudong , 1, *
Expand
  • 1 College of Animal Science and Technology, Hebei Agricultural University, Baoding 071000, China
  • 2 Jinzhou Agricultural Comprehensive Administrative Law Enforcement Brigade, Jinzhou 052260, China
* associate professor, E-mail:

Received date: 2026-01-20

  Online published: 2026-09-12

摘要

本试验旨在探究连续腹腔注射敌草快(DQ)对肉鸡生长性能、机体抗氧化能力、肠道健康及血清代谢物的影响。选取240只1日龄科宝肉鸡,随机分为3组,每组8个重复,每个重复10只鸡。在8、18、28、38日龄,T1和T2组肉鸡分别腹腔注射2.5和5.0 mg/kg BW DQ(DQ溶于生理盐水,对应的浓度分别为2.5、5.0 mg/mL),CON组则腹腔注射等量生理盐水。试验期42 d。结果表明:1)与CON组相比,T1和T2组1~21日龄和1~42日龄阶段平均日增重(ADG)显著降低(P<0.05),同时料重比(F/G)显著升高(P<0.05)。2)与CON组相比,T1和T2组各阶段血清谷丙转氨酶(ALT)、谷草转氨酶(AST)活性及丙二醛(MDA)含量均显著升高(P<0.05),且存在显著剂量-时间交互效应;同时42日龄血清、肝脏及空肠中超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性与总抗氧化能力(T-AOC)均显著降低(P<0.05)。3)与CON组相比,T1和T2组空肠绒毛高度(VH)和绒隐比(VH/CD)显著降低(P<0.05),隐窝深度(CD)显著升高(P<0.05)。4)与CON组相比,T2组肝脏和空肠中核因子E2相关因子2(Nrf2)、血红素加氧酶-1(HO-1)和超氧化物歧化酶2(SOD2)的mRNA相对表达量显著下调(P<0.05),PTEN诱导假定激酶1(PINK1)的mRNA相对表达量显著上调(P<0.05)。5)与CON组相比,T1和T2组空肠有益菌[如联合乳杆菌属(Ligilactobacillus)]相对丰度下降,致病菌[如劳森氏菌属(Lawsonia)]相对丰度升高。6)血清代谢组学分析筛选出大量差异代谢物,主要富集于甘油磷脂代谢、精氨酸-脯氨酸代谢和乙醛酸与二羧酸代谢等通路。综上所述,连续腹腔注射5.0 mg/kg BW DQ可通过抑制肉鸡生长性能、破坏机体氧化还原稳态、损伤肠道结构与菌群平衡、干扰能量及脂质代谢,成功构建肉鸡慢性氧化应激模型,至42日龄时肉鸡仍处于累积性氧化损伤的持续期。

本文引用格式

赵紫茵 , 刘博 , 高利晓 , 张佳琳 , 李硕 , 魏梦茹 , 刘树栋 . 通过连续腹腔注射敌草快建立肉鸡慢性氧化应激模型[J]. 动物营养学报, 2026 , 38(9) : 6991 -7011 . DOI: 10.12418/CJAN2026.558

Abstract

This study aimed to investigate the effects of repeated intraperitoneal injections of diquat (DQ) on growth performance, antioxidant capacity, intestinal health and serum metabolism in broilers. A total of 240 one-day-old Cobb broilers were randomly allocated to three groups, with 8 replicates per group and 10 birds per replicate. On the 8, 18, 28 and 38 days of age, broilers in T1 and T2 groups were intraperitoneally injected with diquat (DQ) at doses of 2.5 and 5.0 mg/kg BW (DQ was dissolved in normal saline to final concentrations of 2.5 and 5.0 mg/mL), respectively, while broilers in the CON group received an equal volume of normal saline at 1.0 mL/kg BW via intraperitoneal injection. The experiment lasted for 42 days. The results showed as follows: 1) compared with the CON group, average daily gain (ADG) during 1 to 21 days of age and 1 to 42 days of age was significantly decreased (P<0.05), while the feed-to-gain ratio (F/G) was significantly increased in both T1 and T2 groups (P<0.05). 2) Compared with the CON group, the activities of serum alanine aminotransferase (ALT) and aspartate aminotransferase (AST), as well as the malondialdehyde (MDA) content, were significantly increased in the T1 and T2 groups at all stages (P<0.05), with significant dose-time interaction effects; meanwhile, the activities of superoxide dismutase (SOD), glutathione peroxidase (GSH-Px) and total antioxidant capacity (T-AOC) in serum, liver and jejunum at 42 days of age were significantly decreased in the T1 and T2 groups (P<0.05). 3) Compared with the CON group, the jejunal villus height (VH) and villus height-to-crypt depth ratio (VH/CD) were significantly decreased (P<0.05), while the crypt depth (CD) was significantly increased in the T1 and T2 groups (P<0.05). 4) Compared with the CON group, the mRNA relative expression levels of nuclear factor erythroid 2-related factor 2 (Nrf2), heme oxygenase-1 (HO-1) and superoxide dismutase 2 (SOD2) in liver and jejunum were significantly downregulated (P<0.05), whereas the mRNA relative expression level of PTEN-induced putative kinase 1 (PINK1) was significantly upregulated in the T2 group (P<0.05). 5) Compared with the CON group, the relative abundance of beneficial bacteria (e.g., Ligilactobacillus) in jejunum decreased, while that of pathogenic bacteria (e.g., Lawsonia) increased in the T1 and T2 groups. 6) Serum metabolomics analysis identified numerous differential metabolites, which were mainly enriched in pathways including glycerophospholipid metabolism, arginine-proline metabolism, as well as glyoxylate and dicarboxylate metabolism. In conclusion, continuous intraperitoneal injection of DQ at 5.0 mg/kg BW can successfully establish a chronic oxidative stress model in broilers by inhibiting growth performance, disrupting redox homeostasis, damaging intestinal structure and microflora balance, and interfering with energy and lipid metabolism. By 42 days of age, the broilers remain in a persistent state of cumulative oxidative damage.

在现代集约化养殖中,氧化应激已成为一种普遍存在的生产性应激,其诱发因素复杂多样,包括高饲养密度[1]、营养管理不善、饲料脂质氧化[2]、霉菌毒素污染[3]、重金属暴露[4]及其他外源有害化合物[5]的暴露。氧化应激的本质是机体促氧化系统与抗氧化系统间的稳态失衡[6-7],引发活性氧(ROS)的过量累积,过量的ROS会攻击蛋白质、脂质及DNA等关键生物大分子[8],导致细胞损伤与功能障碍,进而导致生产性能下降[9]、免疫抑制[8],以及肝脏与肾脏[10]、肠道[11]等多器官损伤,严重威胁家禽健康与养殖效益[12]
敌草快(DQ)是一种联吡啶类阳离子除草剂,易在氧分子参与下转化为自由基,产生超氧阴离子、过氧化氢等ROS,进而引发脂质过氧化、蛋白质氧化和DNA损伤,直接消耗谷胱甘肽等内源性抗氧化剂[13],还可抑制核因子E2相关因子2(Nrf2)通路及下游抗氧化酶的表达[14]。DQ诱导的氧化应激模型因其操作简便、剂量可控、效应明确,已被广泛应用于猪、鸡等畜禽的氧化应激机制研究及抗应激添加剂评价中[15-16]。相比之下,热应激、运输应激等模型虽更贴近生产实际,但易受环境温度、湿度、动物个体差异等多因素干扰,模型稳定性相对较低[17]。此外,与仅作用于肠道的过氧化氢或百草枯不同,DQ可同时诱发肠道、肝脏、肾脏及肌肉组织的氧化应激,符合畜禽生产实践中多重应激并存的特点[18]。然而,实际生产中氧化应激的形成本质是一个长期、慢性的过程,但关于肉鸡慢性氧化应激或慢性损伤的研究尚不充分。因此,亟需构建更贴近生产实际的肉鸡慢性氧化应激或慢性氧化损伤的模型,以弥补现有研究的不足。本研究在参考前人报道[18-22]的基础上,通过改进DQ注射剂量和给药方式(减少注射剂量并增加注射频率),通过连续腹腔注射不同剂量DQ,系统性评估其对肉鸡生长性能、抗氧化能力、肠道健康及血清代谢组的多维度影响,以期构建更符合养殖过程中氧化应激发生特征的慢性氧化应激模型,更精准、可靠地模拟实际生产环境中多应激源诱导的慢性氧化应激,从而为深入解析肉鸡慢性氧化应激的病理生理机制、制订针对性的营养防控策略奠定坚实的理论依据与实践基础。

1 材料与方法

1.1 试验设计

选取240只1日龄科宝肉鸡(购自河北玖兴农牧发展有限公司),随机分成3个组,每组8个重复,每个重复10只鸡。配制浓度分别为2.5、5.0 mg/mL的DQ溶液(购自山东三农生物科技有限公司),于8、18、28、38日龄按照1 mL/kg BW剂量对T1、T2组肉鸡进行腹腔注射,T1、T2组对应的DQ给药量分别为2.5、5.0 mg/kg BW;CON组则按照1 mL/kg BW的剂量腹腔注射生理盐水。本试验DQ的注射剂量参考胡月等[19]、李驰等[21]和白冬红等[22]方法并有所改进。试验期42 d。试验期间各组均饲喂相同的基础饲粮,该基础饲粮参照《鸡饲养标准》(NY/T 33—2004)进行配制,其组成及营养水平见表1。饲粮中粗蛋白质、钙和总磷含量分别依据GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018测定;代谢能、非植酸磷和可消化氨基酸含量参照《中国饲料成分及营养价值表(2024年第35版)》计算。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis)

项目
Items
1~21日龄
1 to 21 days
of age
22~42日龄
22 to 42
days of age
原料Ingredients
玉米Corn 51.10 54.00
豆粕Soybean meal 40.20 35.15
豆油Soybean oil 3.70 5.85
预混料Premix1) 5.00 5.00
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 13.00 13.15
粗蛋白质CP 22.00 20.00
钙Ca 0.85 0.70
总磷TP 0.65 0.55
非植酸磷NPP 0.59 0.53
可消化赖氨酸DLys 1.59 1.45
可消化蛋氨酸DMet 0.60 0.57
可消化苏氨酸DThr 1.00 0.92

1)5%预混料由1.5%的石粉、1.5%的磷酸氢钙、0.5%的食盐、0.8%氨基酸和0.7%的多维多矿组成 The 5% premix contained 1.5% limestone, 1.5% CaHPO4, 0.5% NaCl, 0.8% amino acids and 0.7% vitamins and minerals。多维多矿为每千克饲粮提供 The vitamins and minerals provided the following per kg of diets:VA 10 000 IU,VB1 3 mg,VB2 9 mg,VB6 4 mg,VB12 20 μg,VD3 5 000 IU,VE 80 IU,VK3 3 mg,D-泛酸 D-pantothenic acid 15 mg,烟酸 nicotinic acid 60 mg,叶酸 folic acid 2 mg,生物素 biotin 0.15 mg,氯化胆碱 choline chloride 1 000 mg,Zn 100 mg,Mn 100 mg,Fe 40 mg,Cu 15 mg,I 1 mg,Se 0.35 mg。

2)代谢能、非植酸磷和可消化氨基酸为计算值,其余为测定值。ME, NPP and digestible amino acids were calculated values, while the others were measured values.

1.2 饲养管理

动物试验严格按照ARRIVE指南进行,经河北农业大学实验动物伦理委员会批准(批准号:2024062)。根据GB 2763—2021《食品安全国家标准 食品中农药最大残留限量》,DQ在动物源性食品中的最大残留限量为0.05 mg/kg。因试验动物腹腔注射高剂量DQ,体内残留水平远超食品安全标准。所有试验鸡只均需按照试验动物伦理要求进行无害化处理,不可流入市场。试验期间肉鸡采用舍内笼养,自由采食和饮水,定期清理鸡舍卫生,并按照科宝肉鸡饲养管理要求设置舍内温度、光照和相对湿度等。

1.3 样品采集

各组试验肉鸡分别于17、27、37、42日龄翅下静脉采血,静置30 min后1 509×g离心10 min,分离血清并于-80 ℃保存。42日龄采血结束后,采用颈椎脱位法处死,取肝脏(约1 g)、空肠组织(1~2 cm)置于4%多聚甲醛中固定;另取适量肝脏、十二指肠、空肠组织及空肠内容物,经液氮速冻后转移至-80 ℃冰箱保存。

1.4 检测指标及方法

1.4.1 生长性能测定

饲养期间以重复为单位,记录肉鸡的给料量、剩料量及各阶段初始体重和终末体重,以计算肉鸡各阶段的平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G),计算公式如下:
ADG(g/d)=(终末体重-初始体重)/(试验天数×肉鸡只数);
ADFI(g/d)=(给料量-剩料量)/(试验天数×肉鸡只数);
F/G=ADFI/ADG。

1.4.2 血清中肝脏损伤指标以及血清、肝脏和肠道中抗氧化指标测定

采用酶联免疫吸附测定(ELISA)试剂盒(北京博锐长远科技有限公司)测定血清中肝脏损伤指标[谷丙转氨酶(ALT)、谷草转氨酶(AST)活性]以及血清、肝脏、十二指肠和空肠中抗氧化指标[超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性,总抗氧化能力(T-AOC)及丙二醛(MDA)含量],测定方法参考试剂盒说明书。

1.4.3 肝脏和空肠中抗氧化相关基因表达检测

按照RNA提取试剂盒(美国GeneCopoeia公司)对肝脏和空肠组织总RNA进行提取,随后使用同品牌相应试剂盒将RNA反转录为cDNA后进行实时荧光定量PCR。PCR所用引物均由上海派森诺生物科技股份有限公司合成,引物序列见表2。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,采用过2-ΔΔCt法计算目的基因Nrf2、血红素加氧酶-1(HO-1)、PTEN诱导假定激酶1(PINK1)和超氧化物歧化酶2(SOD2)的mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因名称
Gene names
引物序列
Primer sequence (5'—3')
GenBank登录号
GenBank accession number
核因子E2相关因子2
Nrf2
F:AAGTCTTCTGGCTGCTATT
R:TCTTGCTGCTGTCTAATCA
NM_001396902
血红素加氧酶-1
HO-1
F:AGTGGTGTAGGTATAGATATGT
R:CAATCTGGCTGTGTTCTC
NM_205344
PTEN诱导假定激酶1
PINK1
F:TTATCTGTAGCGAGTGTT
R:CTGAAGGAGTAGTGATGA
NC_052552.1
超氧化物歧化酶2
SOD2
F:ATACCAGTGATGTGCTTGA
R:TCGCTTGCTTGATTGTTC
NM_204211.2
甘油醛-3-磷酸脱氢酶
GAPDH
F:CACACAGAAGACGGTGGATG
R:CAGCTCAGGGATGACTTTCC
NM_204305

1.4.4 肝脏和空肠组织形态观察

将在4%多聚甲醛中固定的肝脏、空肠组织取出,经冲水、梯度酒精脱水、二甲苯透明、石蜡包埋后制成切片。切片使用苏木精-伊红(HE)染色后,用全景切片扫描仪(PANNORAMIC DESK/MIDI/250/1000,3DHISTECH,匈牙利)扫描,使用CaseViewer 2.4软件采集图像;观察空肠组织形态,测量绒毛高度(VH)和隐窝深度(CD),并计算绒隐比(VH/CD)。

1.4.5 空肠微生物多样性分析

采用E.Z.N.A.® Soil DNA Kit(Omega Bio-Tek,美国)提取空肠内容物微生物总DNA,并通过1%琼脂糖凝胶电泳及NanoDrop 2000(Thermo Fisher Scientific,美国)检测其质量、浓度与纯度。以提取的DNA为模板,使用携带Barcode序列的上游引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和下游引物806R(5'-GGACTACHVGGGTWTCTAAT-3')对16S rRNA基因的V3~V4可变区进行PCR扩增。扩增产物经2%琼脂糖凝胶电泳分离后,使用PCR Clean-Up Kit(上海美吉逾华生物医药科技有限公司)回收纯化,并用Qubit 4.0荧光定量仪(Thermo Fisher Scientific,美国)定量。最终使用NEXTFLEX® Rapid DNA-Seq Kit(Bionano Genomics,美国)对纯化后的PCR产物建库,并委托上海美吉生物医药科技有限公司于Illumina NextSeq 2000平台完成测序。

1.4.6 血清代谢组学分析

采用超高效液相色谱-高分辨质谱联用系统(UHPLC-Orbitrap Exploris 240,Thermo Fisher Scientific,美国)进行血清代谢组学分析,由上海美吉生物医药科技有限公司完成。

1.5 数据处理与统计分析

数据采用Excel 2025进行预处理。微生物组学和代谢组学数据分析在美吉生物云平台上进行;血清中肝脏损伤指标(AST、ALT)和抗氧化指标(SOD、GSH-Px、T-AOC、MDA)采用SPSS 26.0软件中的一般线性模型进行重复测量方差分析,数据以“平均值±标准误”表示。模型中,以处理分组(CON、T1、T2组,即DQ剂量)为组间因子,采样时间(17、27、37、42日龄)为组内因子,分析DQ剂量主效应、采样时间主效应及两者的交互作用。分析前采用Mauchly球形检验判断数据是否满足球形假设,若不满足(P<0.05),采用Greenhouse-Geisser校正结果。若交互作用显著,则进行单因素方差分析,并采用Duncan氏法进行多重比较;若交互作用不显著,则直接分析主效应,采用Duncan氏法进行多重比较。微生物多样性数据的组间差异显著性采用PERMANOVA非参数检验进行分析。代谢组学数据分析中,首先,原始数据经Progenesis QI(Waters,美国)处理后生成数据矩阵,其质谱信息通过与HMDB、Metlin数据库及美吉自建库比对完成代谢物鉴定;随后,将鉴定后的数据矩阵上传至美吉生物云平台(https://cloud.majorbio.com),使用R软件包ropls[23]进行主成分分析(PCA)与正交偏最小二乘判别分析(OPLS-DA)。以变量投影重要程度(VIP)>1且P<0.05为标准筛选差异代谢物;最后,基于KEGG数据库对差异代谢物进行通路注释,并利用Python的Scipy.stats包进行Fisher精确检验,以确定与试验处理最相关的代谢通路。采用Spearman相关性对空肠中抗氧化指标和抗氧化相关基因与菌属进行相关性分析,该分析在美吉生物云平台上完成。其余数据运用SPSS 26.0软件进行单因素方差分析,并采用Duncan氏法进行多重比较。使用GraphPad Prism 9.0进行绘图。P<0.05为差异显著,P>0.05为差异不显著。

2 结果与分析

2.1 连续腹腔注射DQ对肉鸡生长性能的影响

表3可知,各组1日龄体重无显著差异(P>0.05);与CON组相比,T1和T2组21和42日龄体重均显著降低(P<0.05)。分阶段来看:1~21日龄,T1和T2组的ADFI和ADG均显著低于CON组(P<0.05),F/G显著高于CON组(P<0.05);22~42日龄,仅T2组ADFI显著低于CON组(P<0.05),且各组间ADG和F/G无显著差异(P>0.05);整个试验期(1~42日龄),不同剂量DQ处理均显著降低了ADFI与ADG(P<0.05),并导致F/G显著上升(P<0.05)。
表3 连续腹腔注射DQ对肉鸡生长性能的影响

Table 3 Effects of continuous intraperitoneal injection of DQ on growth performance of broilers

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON T1 T2
1日龄体重Body weight at 1 day of age/g 53.55 53.55 53.54 0.018 0.702
21日龄体重Body weight at 21 days of age/g 1 031.83a 907.80b 890.40b 19.514 <0.001
42日龄体重Body weight at 42 days of age/g 2 803.17a 2 612.57b 2 559.50b 42.855 <0.001
1~21日龄1 to 21 days of age
平均日采食量ADFI/(g/d) 71.66a 67.79b 68.60b 1.130 0.012
平均日增重ADG/(g/d) 46.59a 40.68b 39.85b 0.929 <0.001
料重比F/G 1.54b 1.67a 1.72a 0.030 <0.001
22~42日龄22 to 42 days of age
平均日采食量ADFI/(g/d) 126.92a 124.88ab 123.52b 1.170 0.040
平均日增重ADG/(g/d) 84.35 81.18 79.49 2.504 0.185
料重比F/G 1.51 1.54 1.55 0.035 0.463
1~42日龄1 to 42 days of age
平均日采食量ADFI/(g/d) 99.29a 96.34b 96.06b 0.738 0.001
平均日增重ADG/(g/d) 65.47a 60.93b 59.67b 1.020 <0.001
料重比F/G 1.52b 1.58a 1.61a 0.020 0.002

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 连续腹腔注射DQ对肉鸡血清中肝脏损伤指标的影响

表4可知,DQ剂量、采样时间及二者的交互作用对血清中ALT、AST活性均有显著影响(P<0.05)。T1和T2组血清中ALT、AST活性在各采样时间点均显著高于CON组(P<0.05),且各组血清中AST活性均随日龄增加而升高。17日龄时,T1和T2组血清中AST和ALT活性均显著高于CON组(P<0.05),且T1和T2组间无显著差异(P>0.05);27、37及42日龄时,T1和T2组血清中AST和ALT活性显著高于CON组(P<0.05)。此外,27、37、42日龄时,T2组血清中AST活性显著高于T1组(P<0.05);37日龄时,T2组血清中ALT活性显著高于T1组(P<0.05)。
表4 连续腹腔注射DQ对肉鸡血清中肝脏损伤指标的影响

Table 4 Effects of continuous intraperitoneal injection of DQ on liver injury indicators in serum of broilers

项目
Items
日龄
Days of
age
组别Groups PP-value
CON T1 T2 DQ剂量
DQ dose
采样时间
Sampling
time
DQ剂量×
采样时间
DQ dose×
sampling time
谷草转氨酶
AST/(U/L)
17 180.25±9.84b 208.03±11.75a 222.90±12.91a <0.001 <0.001 <0.001
27 193.59±14.55c 215.79±8.47b 267.98±17.74a
37 279.65±8.81c 316.62±5.96b 384.54±13.55a
42 314.76±7.18c 349.94±10.21b 394.73±10.92a
谷丙转氨酶
ALT/(U/L)
17 2.70±0.10b 3.61±0.11a 3.67±0.18a <0.001 <0.001 <0.001
27 2.83±0.16b 3.60±0.10a 3.67±0.18a
37 2.72±0.20c 3.18±0.14b 3.56±0.09a
42 2.52±0.08b 3.65±0.16a 3.72±0.18a

2.3 连续腹腔注射DQ对肉鸡机体抗氧化指标的影响

2.3.1 连续腹腔注射DQ对肉鸡血清中抗氧化指标的影响

表5可知,DQ剂量、采样时间及二者的交互作用对血清中抗氧化指标均有显著影响(P<0.05)。与CON组相比,T1和T2组17、27、37、42日龄血清中SOD、GSH-Px活性均显著降低(P<0.05),MDA含量均显著升高(P<0.05);T1和T2组27和42日龄血清中T-AOC均显著降低(P<0.05)。此外,17、27和42日龄时,T2组血清中SOD活性显著低于T1组(P<0.05);17和27日龄时,血清中MDA含量显著高于T1组(P<0.05);17、37和42日龄时,T2组血清中GSH-Px活性显著低于T1组(P<0.05);42日龄时,T2组血清中T-AOC显著低于T1组(P<0.05)。
表5 连续腹腔注射DQ对肉鸡血清抗氧化指标的影响

Table 5 Effects of continuous intraperitoneal injection of DQ on antioxidant indicators in serum of broilers

项目
Items
日龄
Days of
age
组别Groups PP-value
CON T1 T2 DQ剂量
DQ dose
采样时间
Sampling
time
DQ剂量×
采样时间
DQ dose×
sampling time
超氧化物歧化酶
SOD/(U/mL)
17 546.30±23.45a 453.38±29.00b 364.71±79.64c <0.001 <0.001 <0.001
27 585.39±17.10a 469.14±30.65b 348.18±27.81c
37 538.80±20.40a 369.08±17.22b 372.53±10.10b
42 530.87±17.72a 503.81±12.51b 468.61±18.07c
谷胱甘肽过氧
化物酶
GSH-Px/(U/mL)
17 520.02±7.66a 466.20±5.19b 449.97±6.64c <0.001 <0.001 <0.001
27 525.12±11.90a 450.63±6.08b 441.74±6.81b
37 521.82±3.77a 467.08±6.88b 455.47±5.08c
42 520.00±5.23a 483.28±7.16b 464.03±10.57c
总抗氧化能力
T-AOC/(U/mL)
17 24.41±0.73 23.23±1.21 23.59±1.16 0.001 0.007 0.043
27 25.41±0.73a 23.99±0.83b 23.05±0.86b
37 24.25±0.97 24.06±1.08 23.33±0.86
42 26.09±0.81a 25.03±0.43b 23.28±0.75c
丙二醛
MDA/(nmol/mL)
17 2.89±0.03c 3.49±0.09b 3.74±0.07a <0.001 0.001 <0.001
27 2.82±0.12c 4.88±0.19b 5.11±0.17a
37 2.88±0.17b 3.12±0.13a 3.28±0.02a
42 2.81±0.15b 3.25±0.13a 3.41±0.09a

2.3.2 连续注射DQ对肉鸡肝脏和肠道中抗氧化指标的影响

表6可知,与CON组相比,T1和T2组肝脏、十二指肠和空肠中SOD活性均显著降低(P<0.05),且T2组肝脏和空肠中SOD活性显著低于T1组(P<0.05);T1和T2组肝脏和空肠中GSH-Px活性显著低于CON组(P<0.05),十二指肠中GSH-Px活性各组间则无显著差异(P>0.05);T1和T2组十二指肠和空肠中T-AOC较CON组显著降低(P<0.05),且T2组十二指肠中T-AOC显著低于T1组(P<0.05),肝脏中T-AOC各组间无显著差异(P>0.05);T1组肝脏中MDA含量较CON组显著升高(P<0.05),空肠中MDA含量则与CON组无显著差异(P>0.05);T2组肝脏和空肠中MDA含量均较CON组显著升高(P<0.05),且其肝脏和空肠中MDA含量显著高于T1组(P<0.05)。
表6 连续腹腔注射DQ对肉鸡肝脏和肠道中抗氧化指标的影响

Table 6 Effects of continuous intraperitoneal injection of DQ on antioxidant indicators in liver and intestine of broilers

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON T1 T2
肝脏Liver
超氧化物歧化酶SOD/(U/mg prot) 23.70a 22.37b 19.01c 0.460 <0.001
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 24.42a 17.44b 17.37b 0.596 <0.001
总抗氧化能力T-AOC/(U/mg prot) 1.50 1.52 1.42 0.047 0.113
丙二醛MDA/(nmol/g prot) 0.93c 0.99b 1.06a 0.053 <0.001
十二指肠Duodenum
超氧化物歧化酶SOD/(U/mg prot) 23.25a 20.90b 19.75b 0.620 <0.001
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 16.53 16.43 16.23 0.345 0.692
总抗氧化能力T-AOC/(U/mg prot) 1.29a 1.20b 1.01c 0.029 <0.001
丙二醛MDA/(nmol/g prot) 0.92 1.02 1.02 0.033 0.059
空肠Jejunum
超氧化物歧化酶SOD/(U/mg prot) 27.23a 22.06b 18.68c 0.576 <0.001
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 24.84a 16.34b 16.57b 0.498 <0.001
总抗氧化能力T-AOC/(U/mg prot) 1.43a 1.32b 1.25b 0.041 0.002
丙二醛MDA/(nmol/g prot) 0.88b 0.89b 1.03a 0.059 <0.001

2.3.3 连续腹腔注射DQ对肉鸡肝脏和空肠中抗氧化相关基因表达的影响

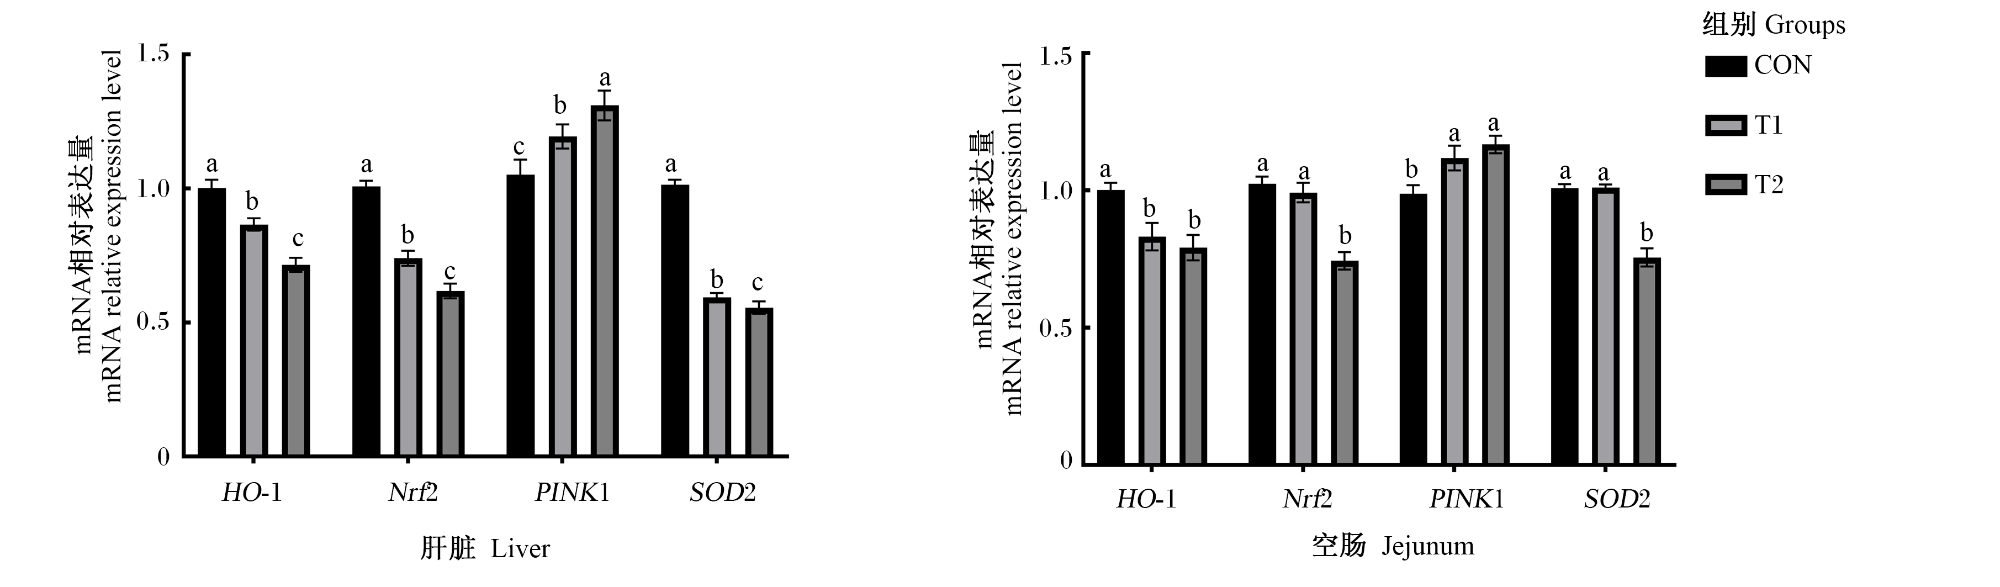
图1所示,与CON组相比,T1和T2组肉鸡肝脏中HO-1、Nrf2和SOD2的mRNA相对表达量均显著降低(P<0.05),且T2组显著低于T1组(P<0.05);T1和T2组肝脏和空肠中PINK1的mRNA相对表达量均显著升高(P<0.05),且T2组肝脏中PINK1的mRNA相对表达量显著高于T1组(P<0.05);T1和T2组空肠中HO-1的mRNA相对表达量均较CON组显著降低(P<0.05),但T1和T2组间无显著差异(P>0.05);空肠中Nrf2和SOD2的mRNA相对表达量表现为T2组显著低于CON和T1组(P<0.05),T1与CON组之间无显著差异(P>0.05)。
图1 肝脏和空肠中抗氧化相关基因的mRNA相对表达量

HO-1:血红素加氧酶-1 heme oxygenase-1;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;PINK1:PTEN诱导假定激酶1 PTEN-induced putative kinase 1;SOD2:超氧化物歧化酶2 superoxide dismutase 2。

数据柱形标注不同小写字母表示差异显著(P<0.05)。Value columns with different small letters mean significant difference (P<0.05).

Fig.1 mRNA relative expression levels of antioxidant-related genes in liver and jejunum

2.4 连续腹腔注射DQ对肉鸡肝脏和空肠形态结构的影响

图2所示,CON组肝窦无明显扩张或挤压,肝细胞圆润、饱满,汇管区无其他明显异常,未见明显的炎性细胞浸润;T1组仅见极少量肝细胞脂肪变性,少见血管与肝窦淤血;T2组可见较多肝细胞脂肪变性,汇管区出现大量以淋巴细胞为主的炎性细胞浸润,周围肝细胞受压形状不规则。各组空肠黏膜损伤程度存在明显差异:CON组黏膜结构正常,炎性浸润轻微;T1组可见轻度炎性浸润,伴随绒毛脱落与水肿;T2组则呈现出损伤加重趋势,表现为重度炎性浸润、绒毛脱落及隐窝丢失。
图2 肉鸡肝脏和空肠组织HE染色切片组织学观察(肝脏:200×;空肠:100×)

绿色箭头指示的是肝窦扩张,紫色箭头指示的是炎性细胞灶性浸润,红色箭头指示的是血管淤血。

Fig.2 Histological observation of HE-stained sections of liver and jejunum tissues in broilers (liver: 200×; jejunum: 100×)

Green arrow showed sinusoidal dilatation, purple arrow showed focal inflammatory cell infiltration, and red arrow showed vascular congestion.

表7可知,与CON组相比,T1和T2组空肠VH均显著降低(P<0.05),且T1和T2组间无显著差异(P>0.05);T1和T2组空肠CD均较CON组显著升高(P<0.05),且T2组显著高于T1组(P<0.05)。T1组空肠VH/CD显著低于CON和T2组(P<0.05),CON与T2组之间无显著差异(P>0.05)。
表7 连续腹腔注射DQ对肉鸡空肠形态结构的影响

Table 7 Effects of continuous intraperitoneal injection of DQ on jejunal morphology of broilers

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON T1 T2
绒毛高度VH/μm 1 780.28a 1 521.84b 1 508.16b 10.312 <0.001
隐窝深度CD/μm 205.20c 229.90b 256.82a 6.495 <0.001
绒隐比VH/CD 7.36a 6.63b 6.95ab 0.194 0.009

2.5 连续腹腔注射DQ对肉鸡空肠微生物多样性的影响

2.5.1 空肠微生物扩增子序列变异(ASV)分布特征
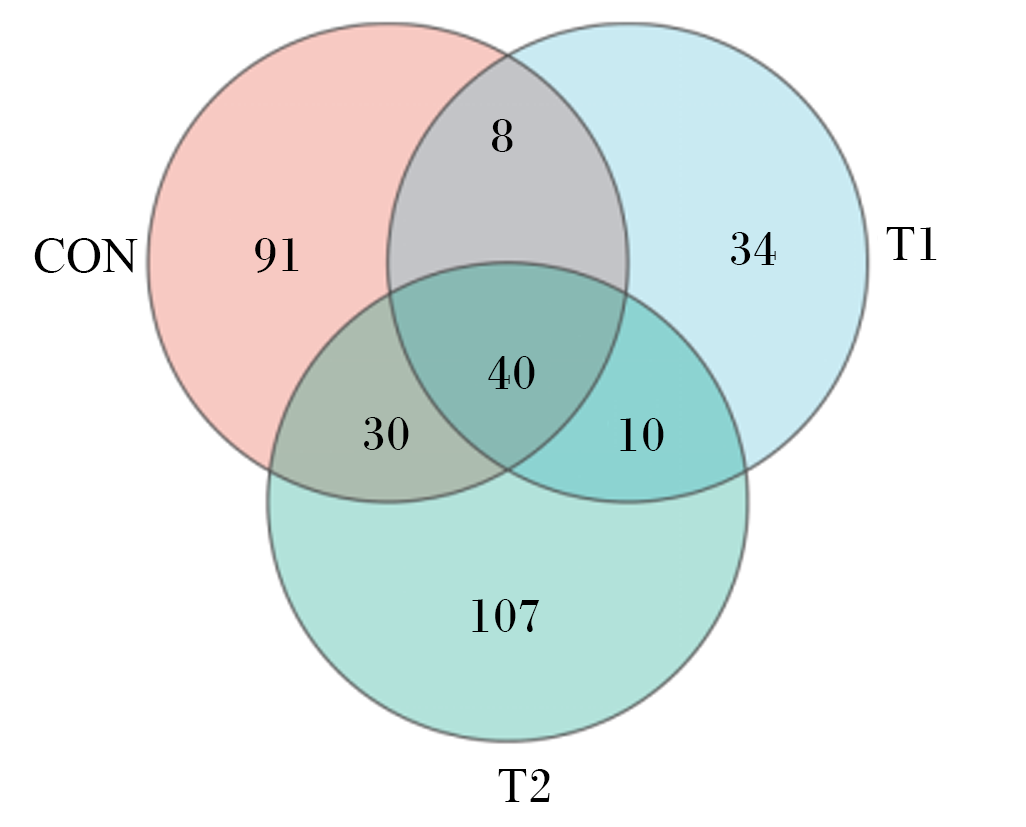
图3所示,3组共有的ASV数目是40,CON组特有的ASV数目是91,T1组特有的ASV数目是34,T2组特有的ASV数目是107。
图3 各组肉鸡空肠微生物ASV韦恩图

Fig.3 Venn diagram of jejunal microbial ASV of broilers in each group

CON:CON组 CON group;T1:T1组 T1 group;T2:T2组 T2 group。下图同 the same as below。

2.5.2 空肠微生物Alpha多样性

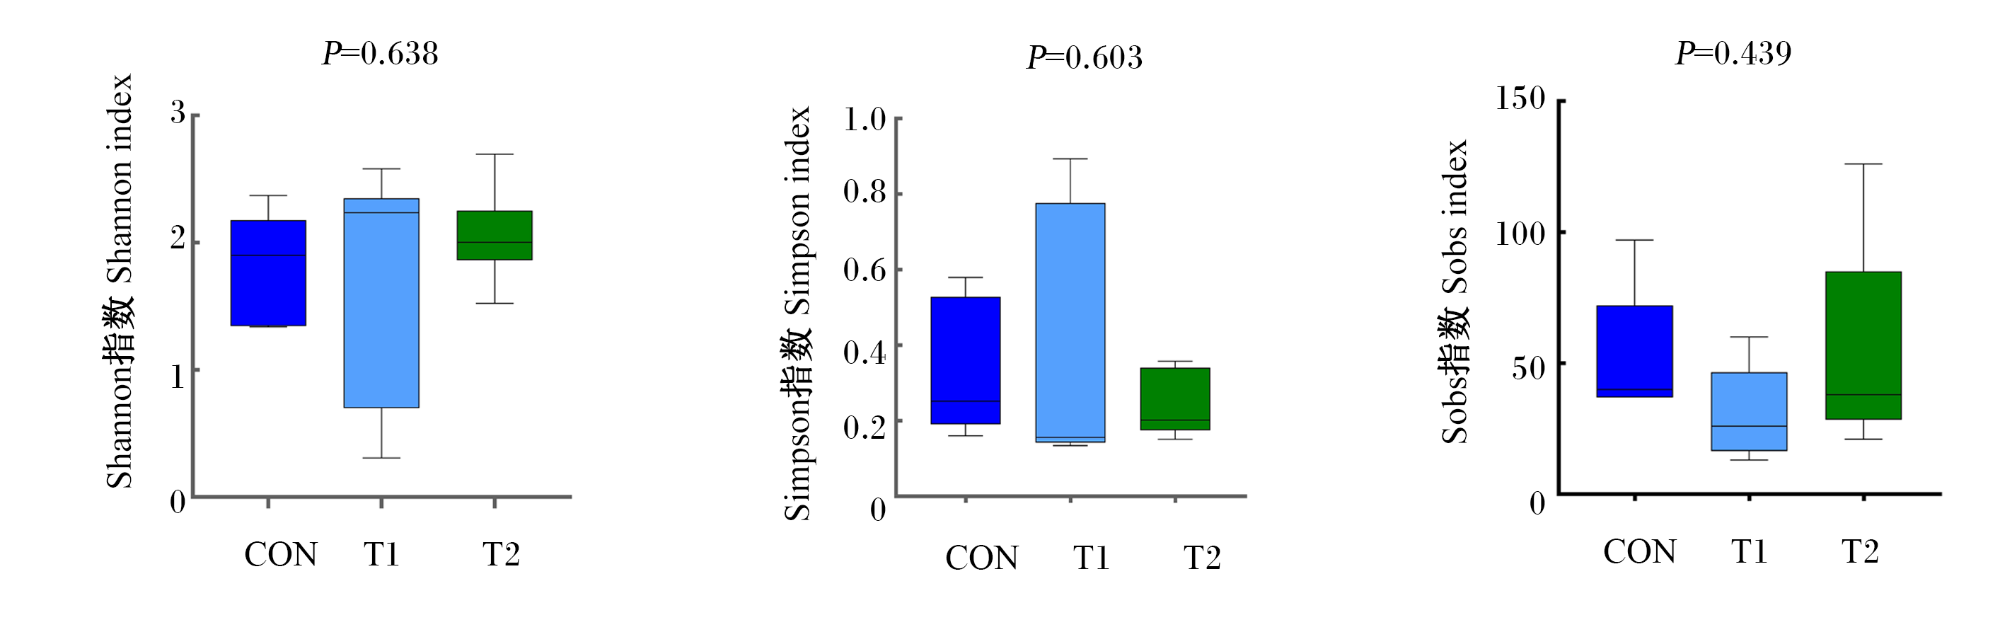
通过Sobs、Simpson和Shannon指数来评估连续腹腔注射DQ对肉鸡空肠微生物Alpha多样性的影响,如图4所示,CON、T1和T2组之间的上述指数均无显著差异(P>0.05)。
图4 空肠微生物Alpha多样性指数

Fig.4 Alpha diversity indexes of jejunal microbiota

2.5.3 空肠微生物Beta多样性

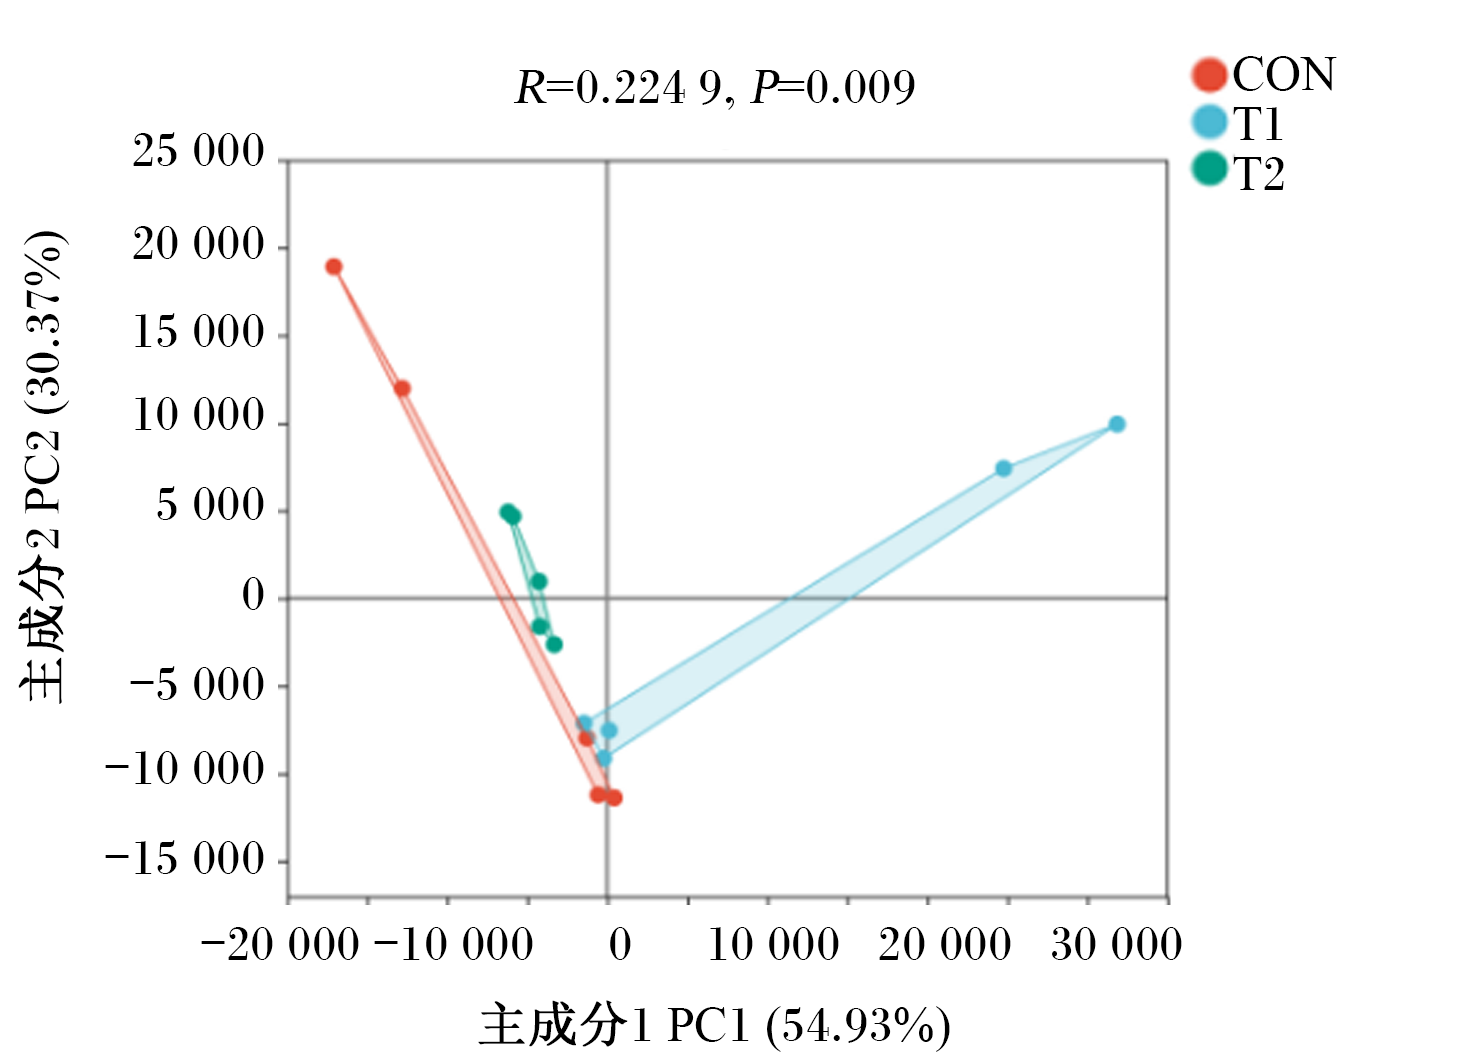
基于ASV的空肠微生物PCA(图5)显示,主成分1(PC1)解释了空肠微生物群落差异的54.93%,主成分2(PC2)解释了30.36%,两者累计解释率达85.29%;各组样本在PCA图中明显分离,相似性分析(ANOSIM)检验显示组间差异显著(P=0.009),表明连续腹腔注射DQ对肉鸡空肠微生物群落结构有显著影响。
图5 基于ASV的空肠微生物主成分分析

Fig.5 PCA of jejunal microbiota based on ASV

2.5.4 空肠微生物在门和属水平上的组成

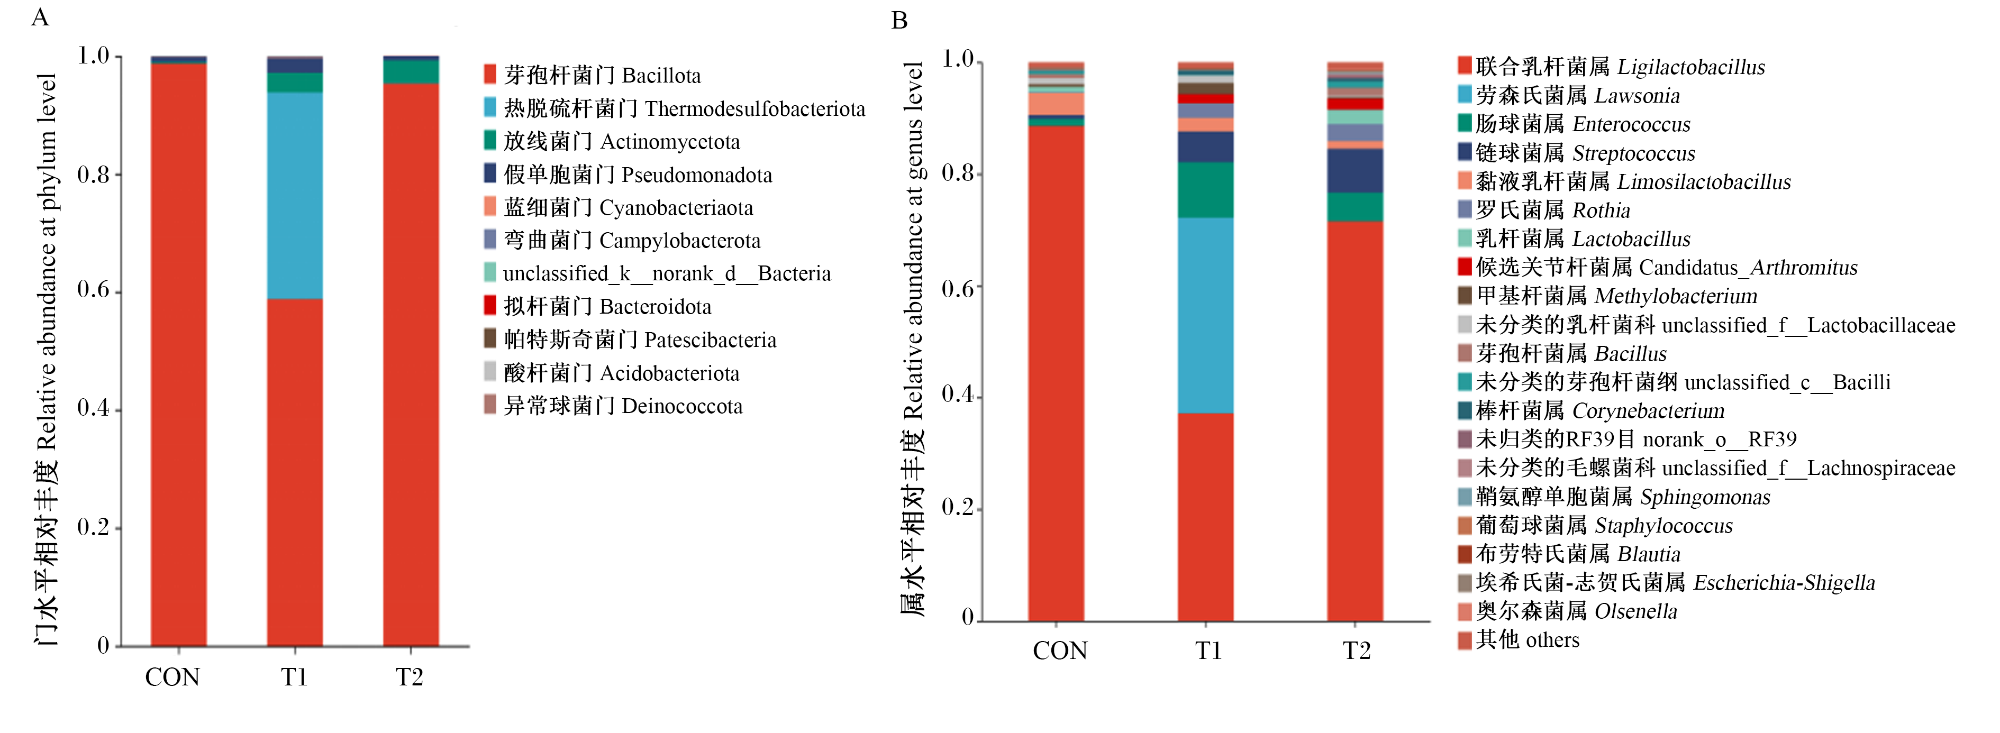
图6-A所示,在门水平上,芽孢杆菌门[Bacillota,旧称厚壁菌门(Firmicutes)]是所有空肠微生物中的核心优势菌门,在群落中占绝对主导地位。其中,CON组中Bacillota的相对丰度超过95%,其他菌门的相对丰度极低;与CON组相比,T1组Bacillota的相对丰度明显降低,同时热脱硫杆菌门(Thermodesulfobacteriota)的相对丰度大幅升高,成为T1组的第二大优势菌门;而T2组的微生物群落组成与CON组高度相似,Bacillota的相对丰度超过95%,除Bacillota外,T2组还检测到少量的放线菌门(Actinomycetota)和极微量的假单胞菌门[Pseudomonadota,旧称变形菌门(Proteobacteria)];Thermodesulfobacteriota的相对丰度异常升高现象在T2组中消失。
图6 空肠微生物在门和属水平上的组成

Fig.6 Composition of jejunal microbiota at phylum and genus levels

图6-B所示,在属水平上,CON组核心优势菌属为联合乳杆菌属(Ligilactobacillus),相对丰度约为90%,乳杆菌属(Lactobacillus)及其他菌属的相对丰度均极低;与CON组相比,T1组Ligilactobacillus的相对丰度降低至约37%,同时劳森氏菌属(Lawsonia)成为第二大优势菌属,相对丰度约为35%,肠球菌属(Enterococcus)、链球菌属(Streptococcus)的相对丰度也明显升高;T2组Ligilactobacillus的相对丰度回升至约73%,Lawsonia几乎消失,群落结构向CON组方向恢复,但EnterococcusStreptococcus的相对丰度仍高于CON组。此外,T1和T2组中候选关节杆菌属(Candidatus_Arthromitus)、葡萄球菌属(Staphylococcus)的相对丰度较CON组略有升高。

2.5.5 空肠微生物LEfSe分析

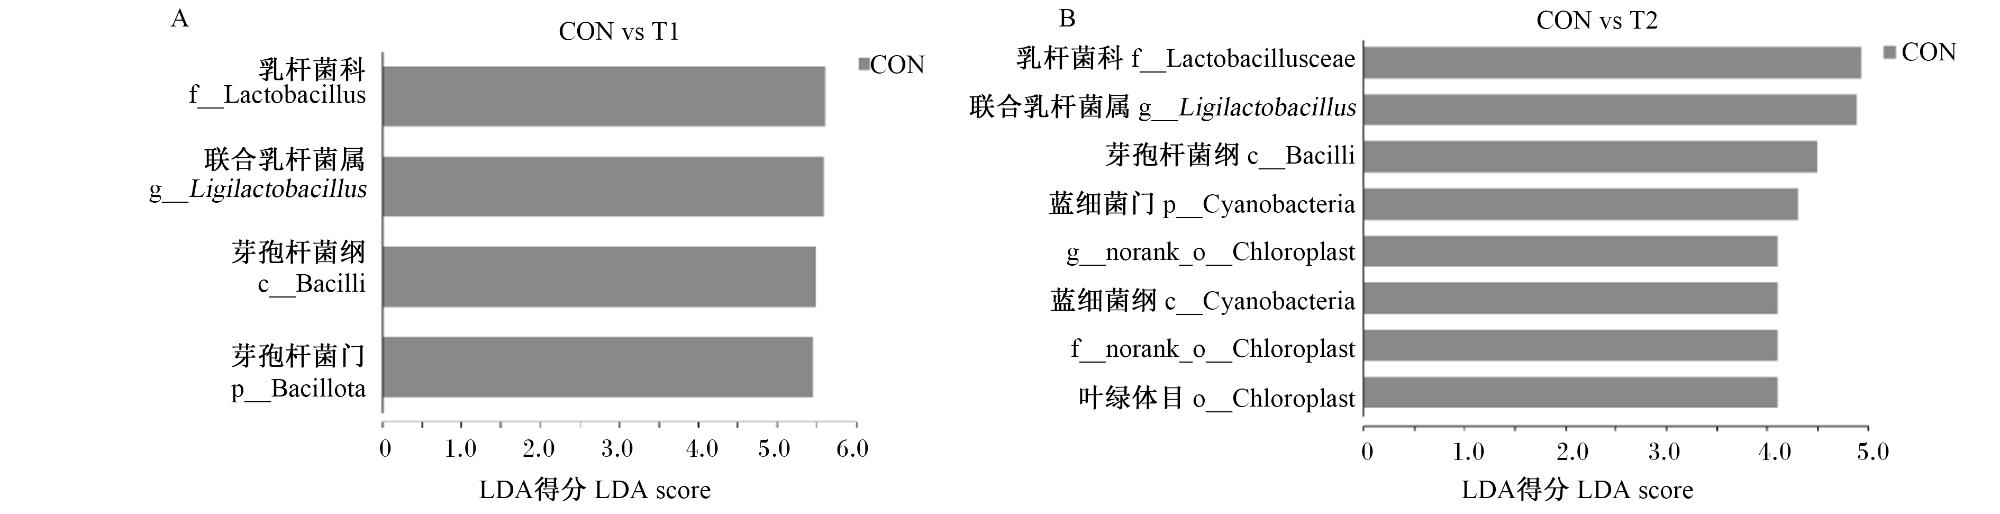
采用LEfSe分析识别空肠微生物群落的物种组成差异,筛选标准为线性判别分析(LDA)得分>2.5且P<0.05。如图7-A(CON组vs T1组)所示,相对于CON组,T1组无显著富集的标志物种;相对于T1组,CON组显著富集Bacillota、芽孢杆菌纲(Bacilli)、乳杆菌科(Lactobacillaceae)及Ligilactobacillus。如图7-B(CON组vs T2组)所示,相对于CON组,T2组无显著富集的标志物种;与T1组的对比结果不同,与T2组对比,CON组除富集上述4个乳杆菌相关的菌群外,还额外富集了蓝细菌门(Cyanobacteriota)。整体来看,T1和T2组均未形成自身特有的微生物标志物种,其微生物群落结构仍以CON组的核心优势类群为基础,但T2组与CON组的差异类群更多。
图7 空肠微生物LEfSe分析

Fig.7 Jejunal microbial LEfSe analysis

2.5.6 空肠中抗氧化指标和抗氧化相关基因与菌属的相关性

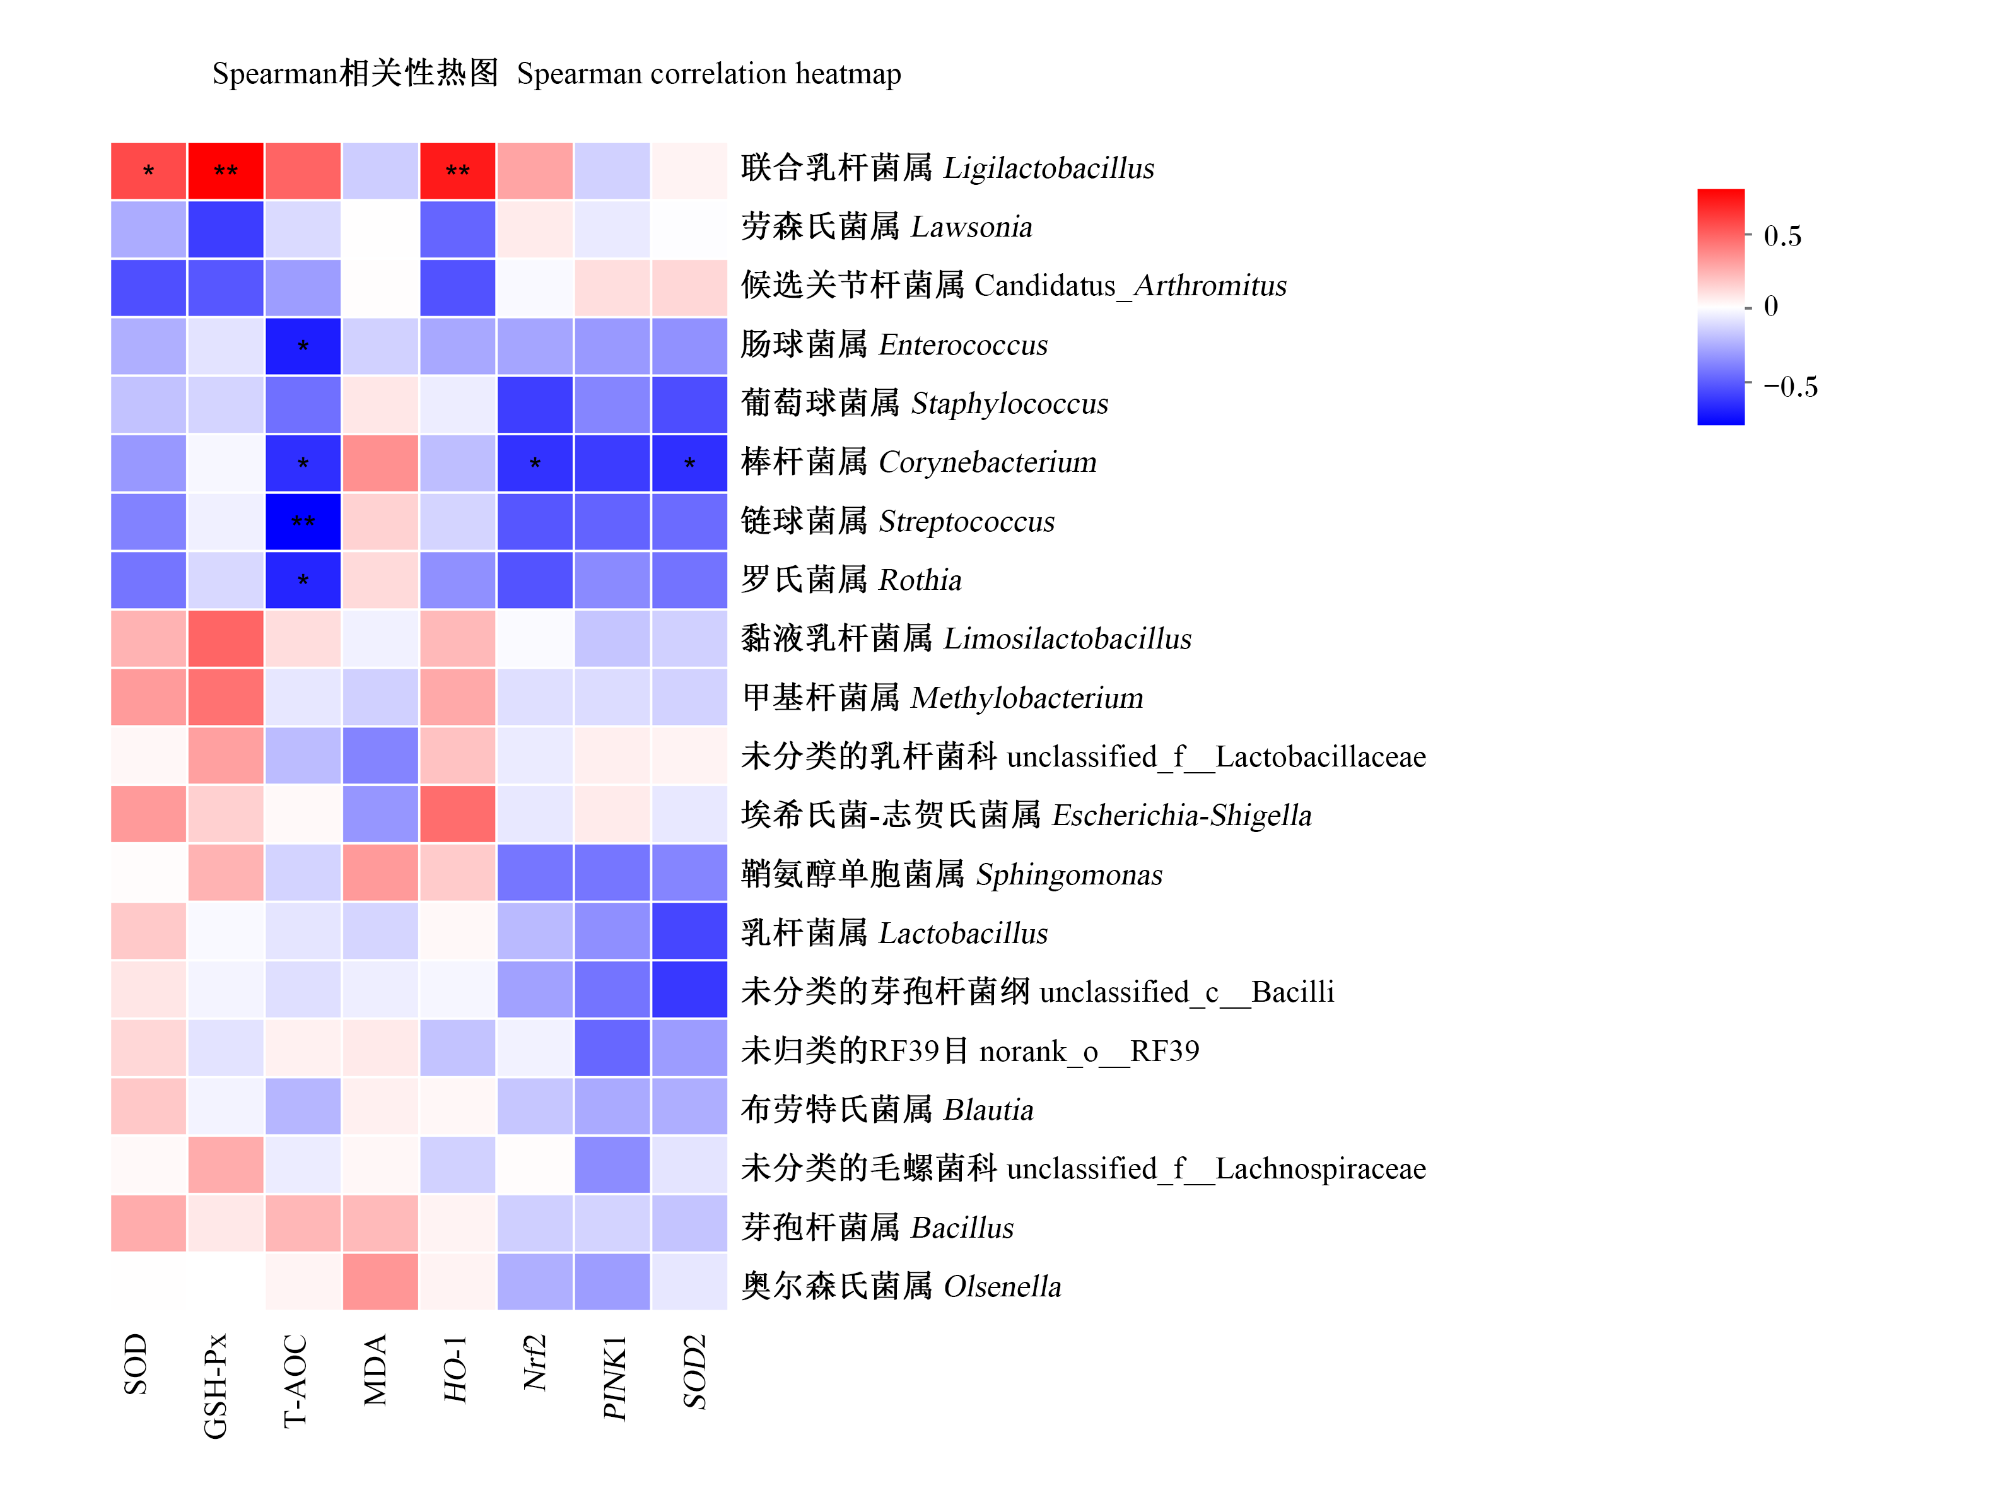
图8所示,SOD活性与Ligilactobacillus的相对丰度呈显著正相关(P<0.05);GSH-Px活性与Ligilactobacillus的相对丰度呈显著正相关(P<0.05);T-AOC与Enterococcus、棒杆菌属(Corynebacterium)、Streptococcus、罗氏菌属(Rothia)的相对丰度呈显著或极显著负相关(P<0.05或P<0.01);HO-1的mRNA相对表达量与Ligilactobacillus的相对丰度呈显著正相关(P<0.05);Nrf2的mRNA相对表达量与Corynebacterium的相对丰度呈显著负相关(P<0.05);SOD2的mRNA相对表达量与Corynebacterium的相对丰度呈显著负相关(P<0.05)。
图8 空肠中抗氧化指标和抗氧化相关基因与菌属的相关性分析

SOD:超氧化物歧化酶 superoxide dismutase;GSH-Px:谷胱甘肽过氧化物酶 glutathione peroxidase;T-AOC:总抗氧化能力 total antioxidant capacity;MDA:丙二醛 malondialdehyde;HO-1:血红素加氧酶-1 heme oxygenase-1;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;PINK1:PTEN诱导假定激酶1 PTEN-induced putative kinase 1;SOD2:超氧化物歧化酶2 superoxide dismutase 2。*:显著相关 significant correlation (P<0.05);**:极显著相关 extremely significant correlation (P<0.01)。

Fig.8 Correlation analysis between antioxidant indicators or antioxidant-related genes and bacterial genera in jejunum

2.6 连续腹腔注射DQ对肉鸡血清代谢物的影响

2.6.1 PLS-DA

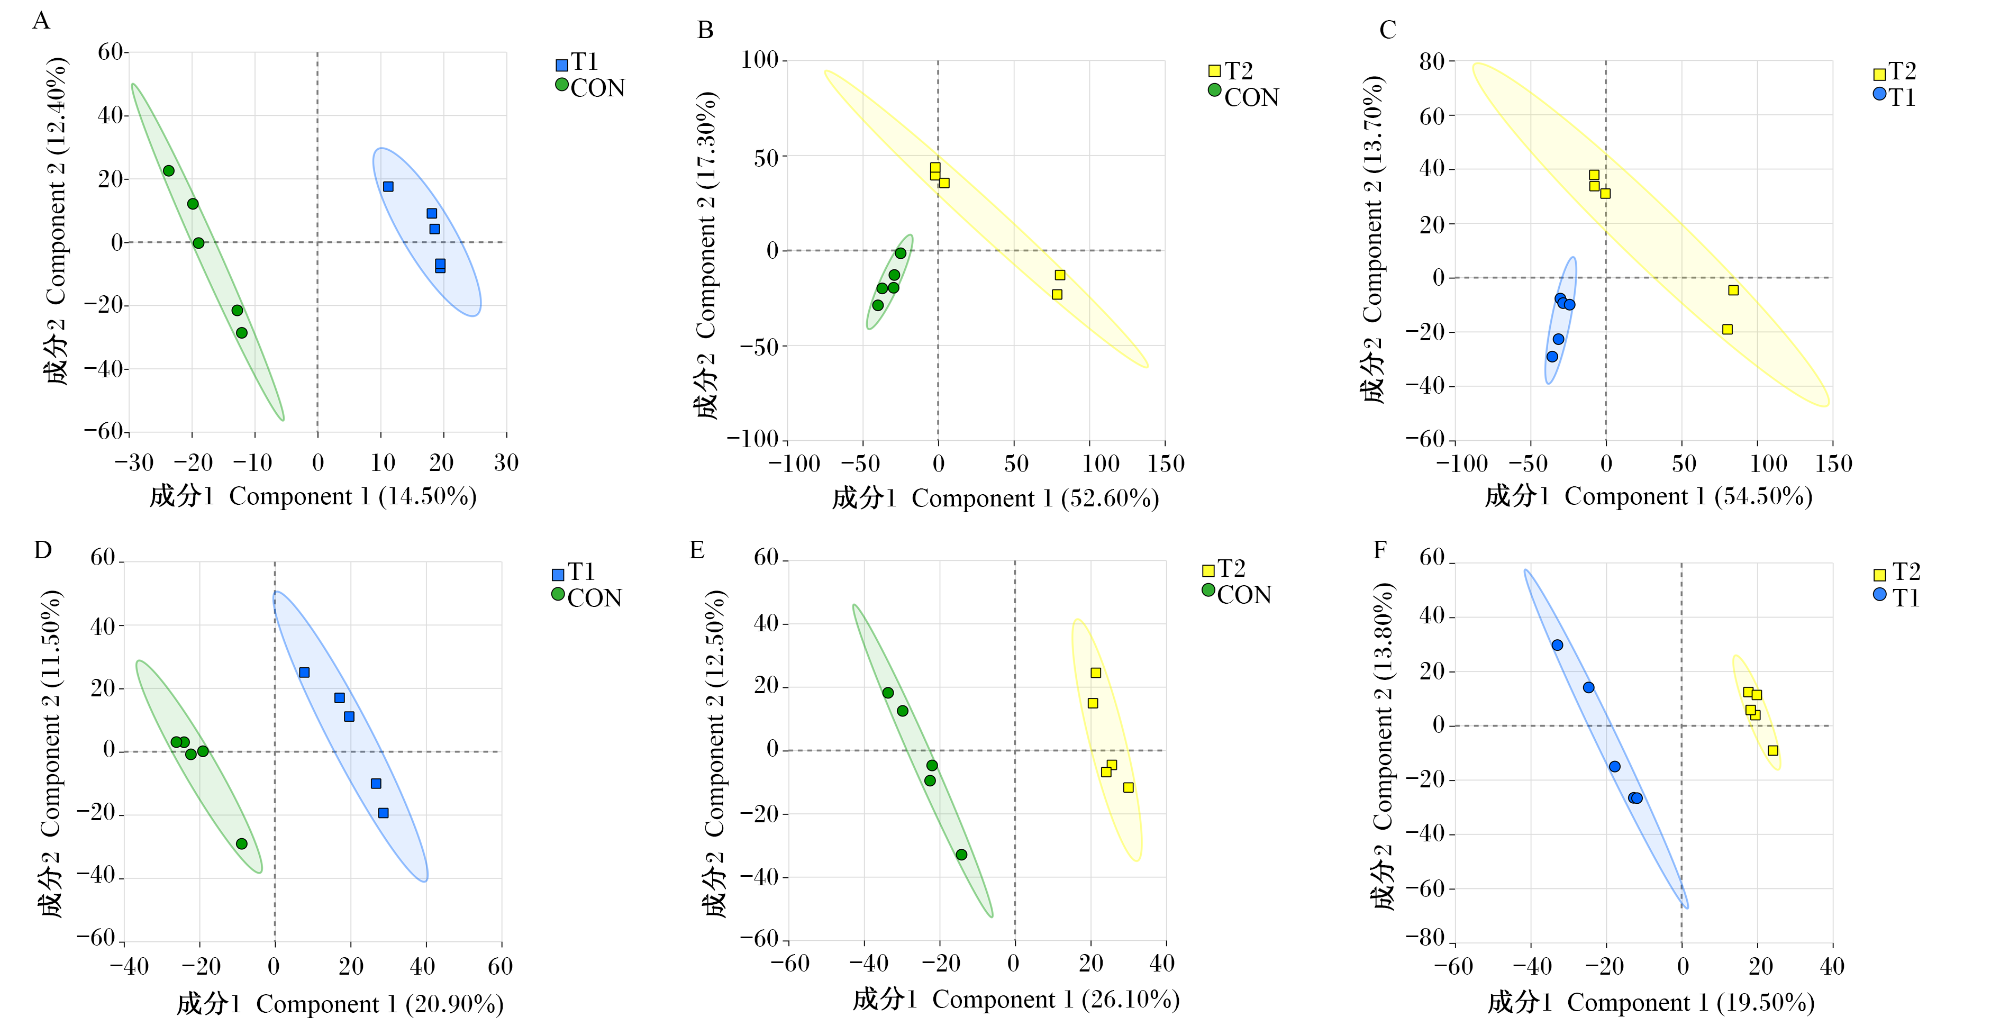
采用PLS-DA对血清代谢物进行组间差异分析,结果显示,各组之间样本分散,组内样本聚集(图9),说明DQ处理会显著改变血清代谢物组成,且低剂量与高剂量DQ处理的肉鸡血清代谢物组成也存在明显差异。
图9 正、负离子模式下的PLS-DA得分图

Fig 9 PLS-DA score plots in positive and negative ion modes

A:CON组vs T1组正离子模式下得分图 score plot of CON group vs T1 group in positive ion mode;B:CON组vs T2组正离子模式下得分图 score plot of CON group vs T2 group in positive ion mode;C:T1组vs T2组正离子模式下得分图 score plot of T1 group vs T2 group in positive ion mode;D:CON组vs T1组负离子模式下得分图 score plot of CON group vs T1 group in negative ion mode;E:CON组vs T2组负离子模式下得分图 score plot of CON group vs T2 group in negative ion mode;F:T1组vs T2组负离子模式下得分图score plot of T1 group vs T2 group in negative ion mode。

2.6.2 差异代谢物的筛选

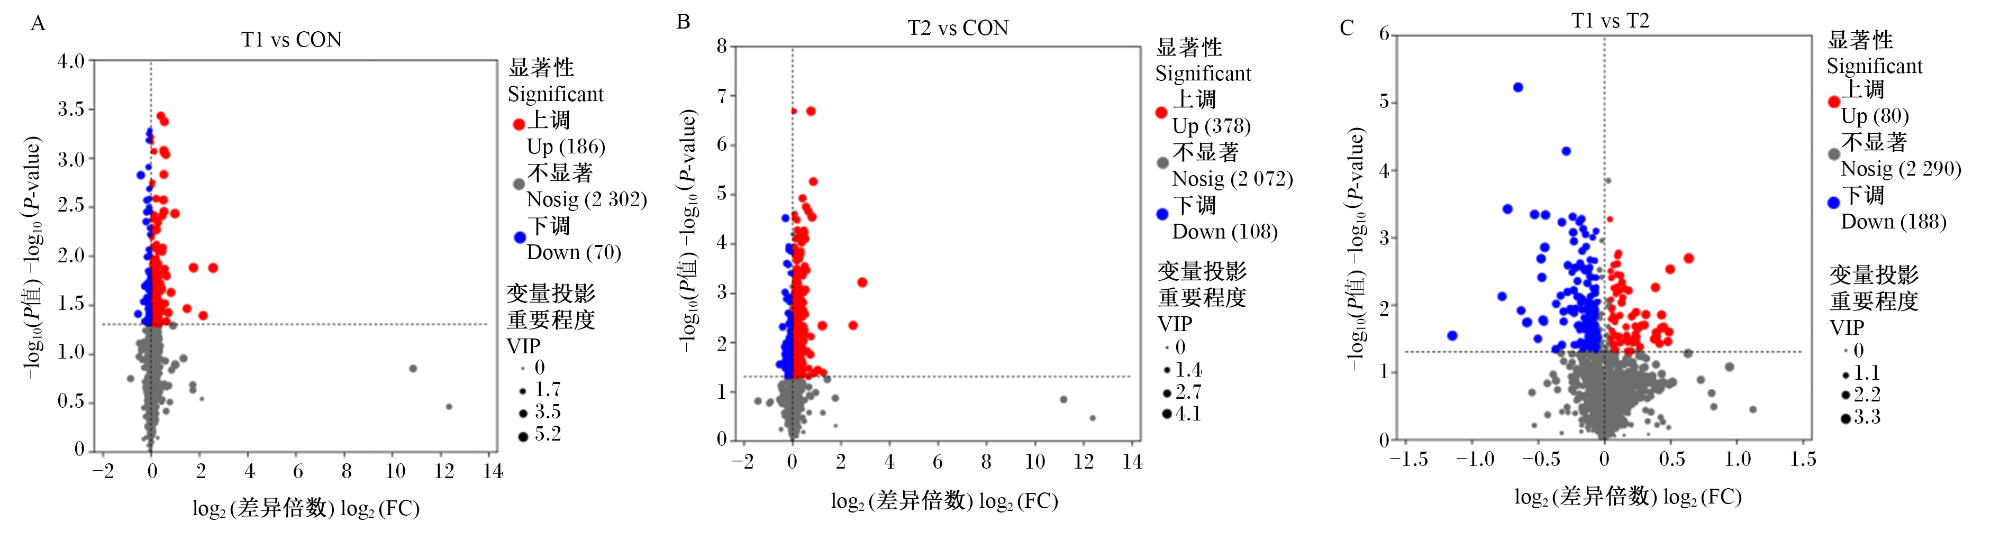
根据OPLS-DA模型得到的VIP值和t检验得到的P值,以VIP>1和P<0.05为筛选标准,鉴定出各组间具有显著性差异的差异代谢物。如图10所示,T1组vs CON组、T2组vs CON组和T1组vs T2组分别筛选出256、486和268种差异代谢物。与CON组相比,T1组有186种上调,70种下调;T2组有378种上调,108种下调;与T2组相比,T1组有80种上调,188种下调。
图10 不同比较组差异代谢物火山图

Fig.10 Volcano plots of differential metabolites in different comparison groups

2.6.3 代谢物聚类分析

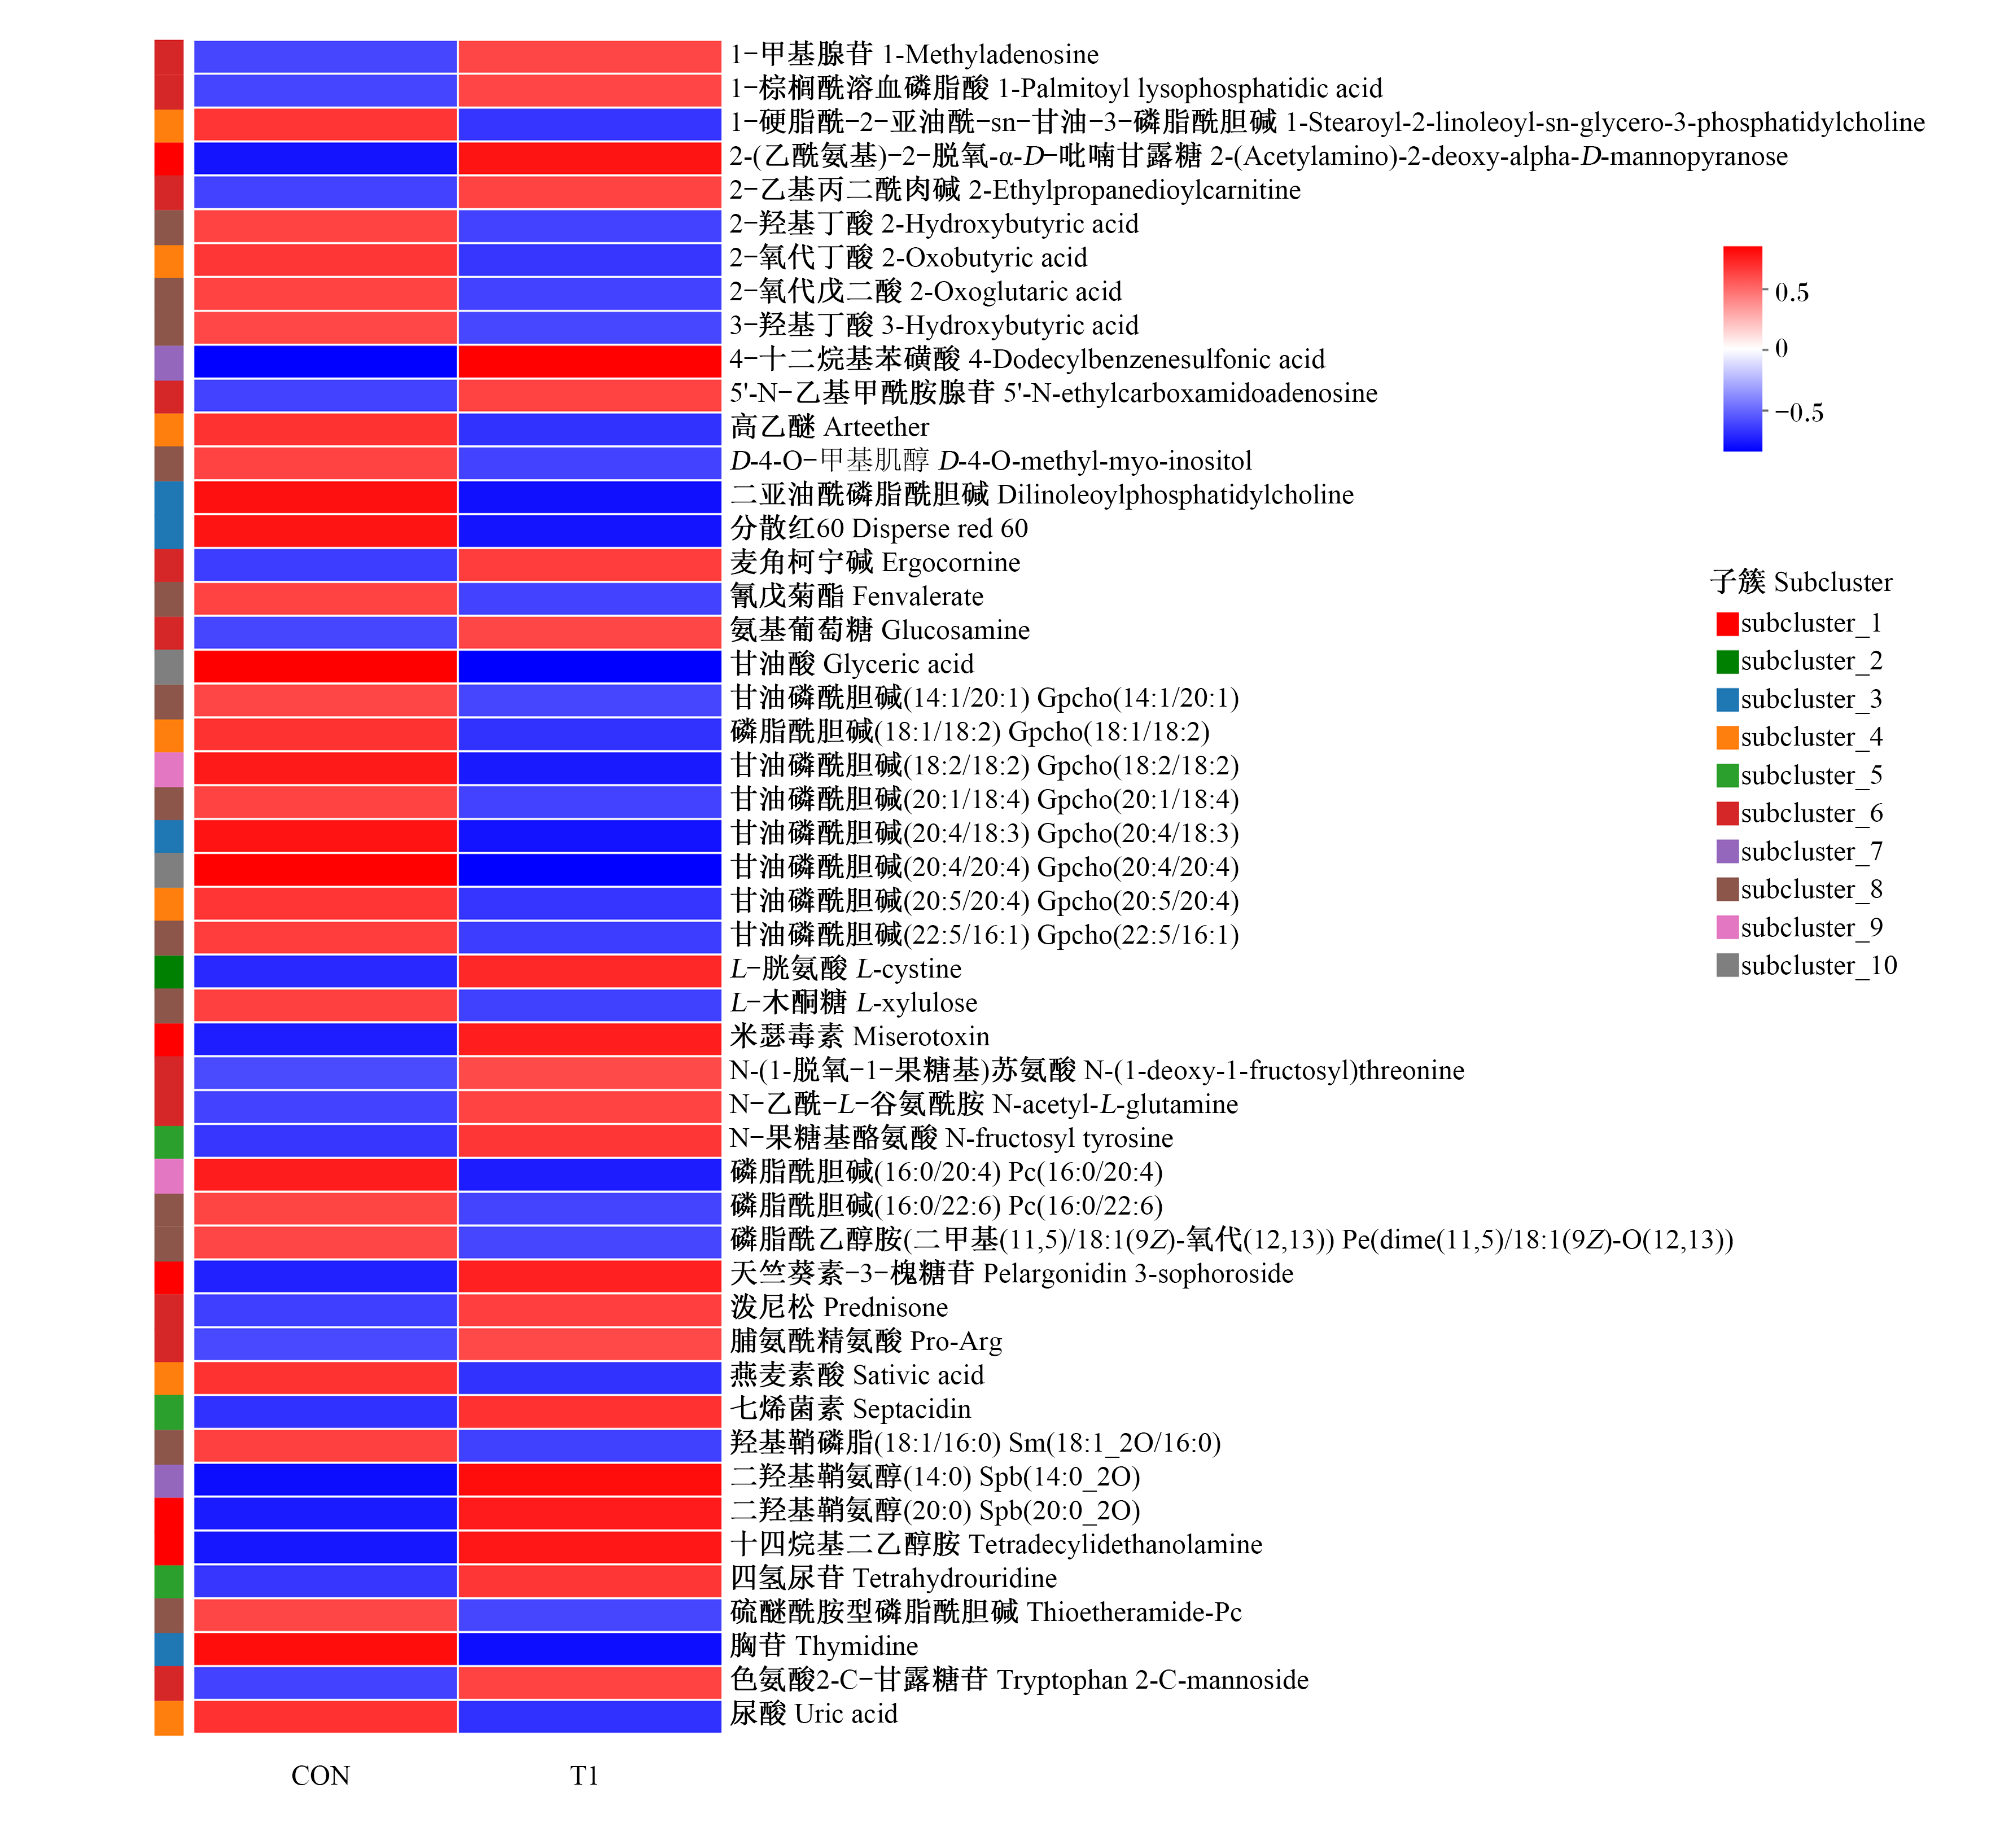
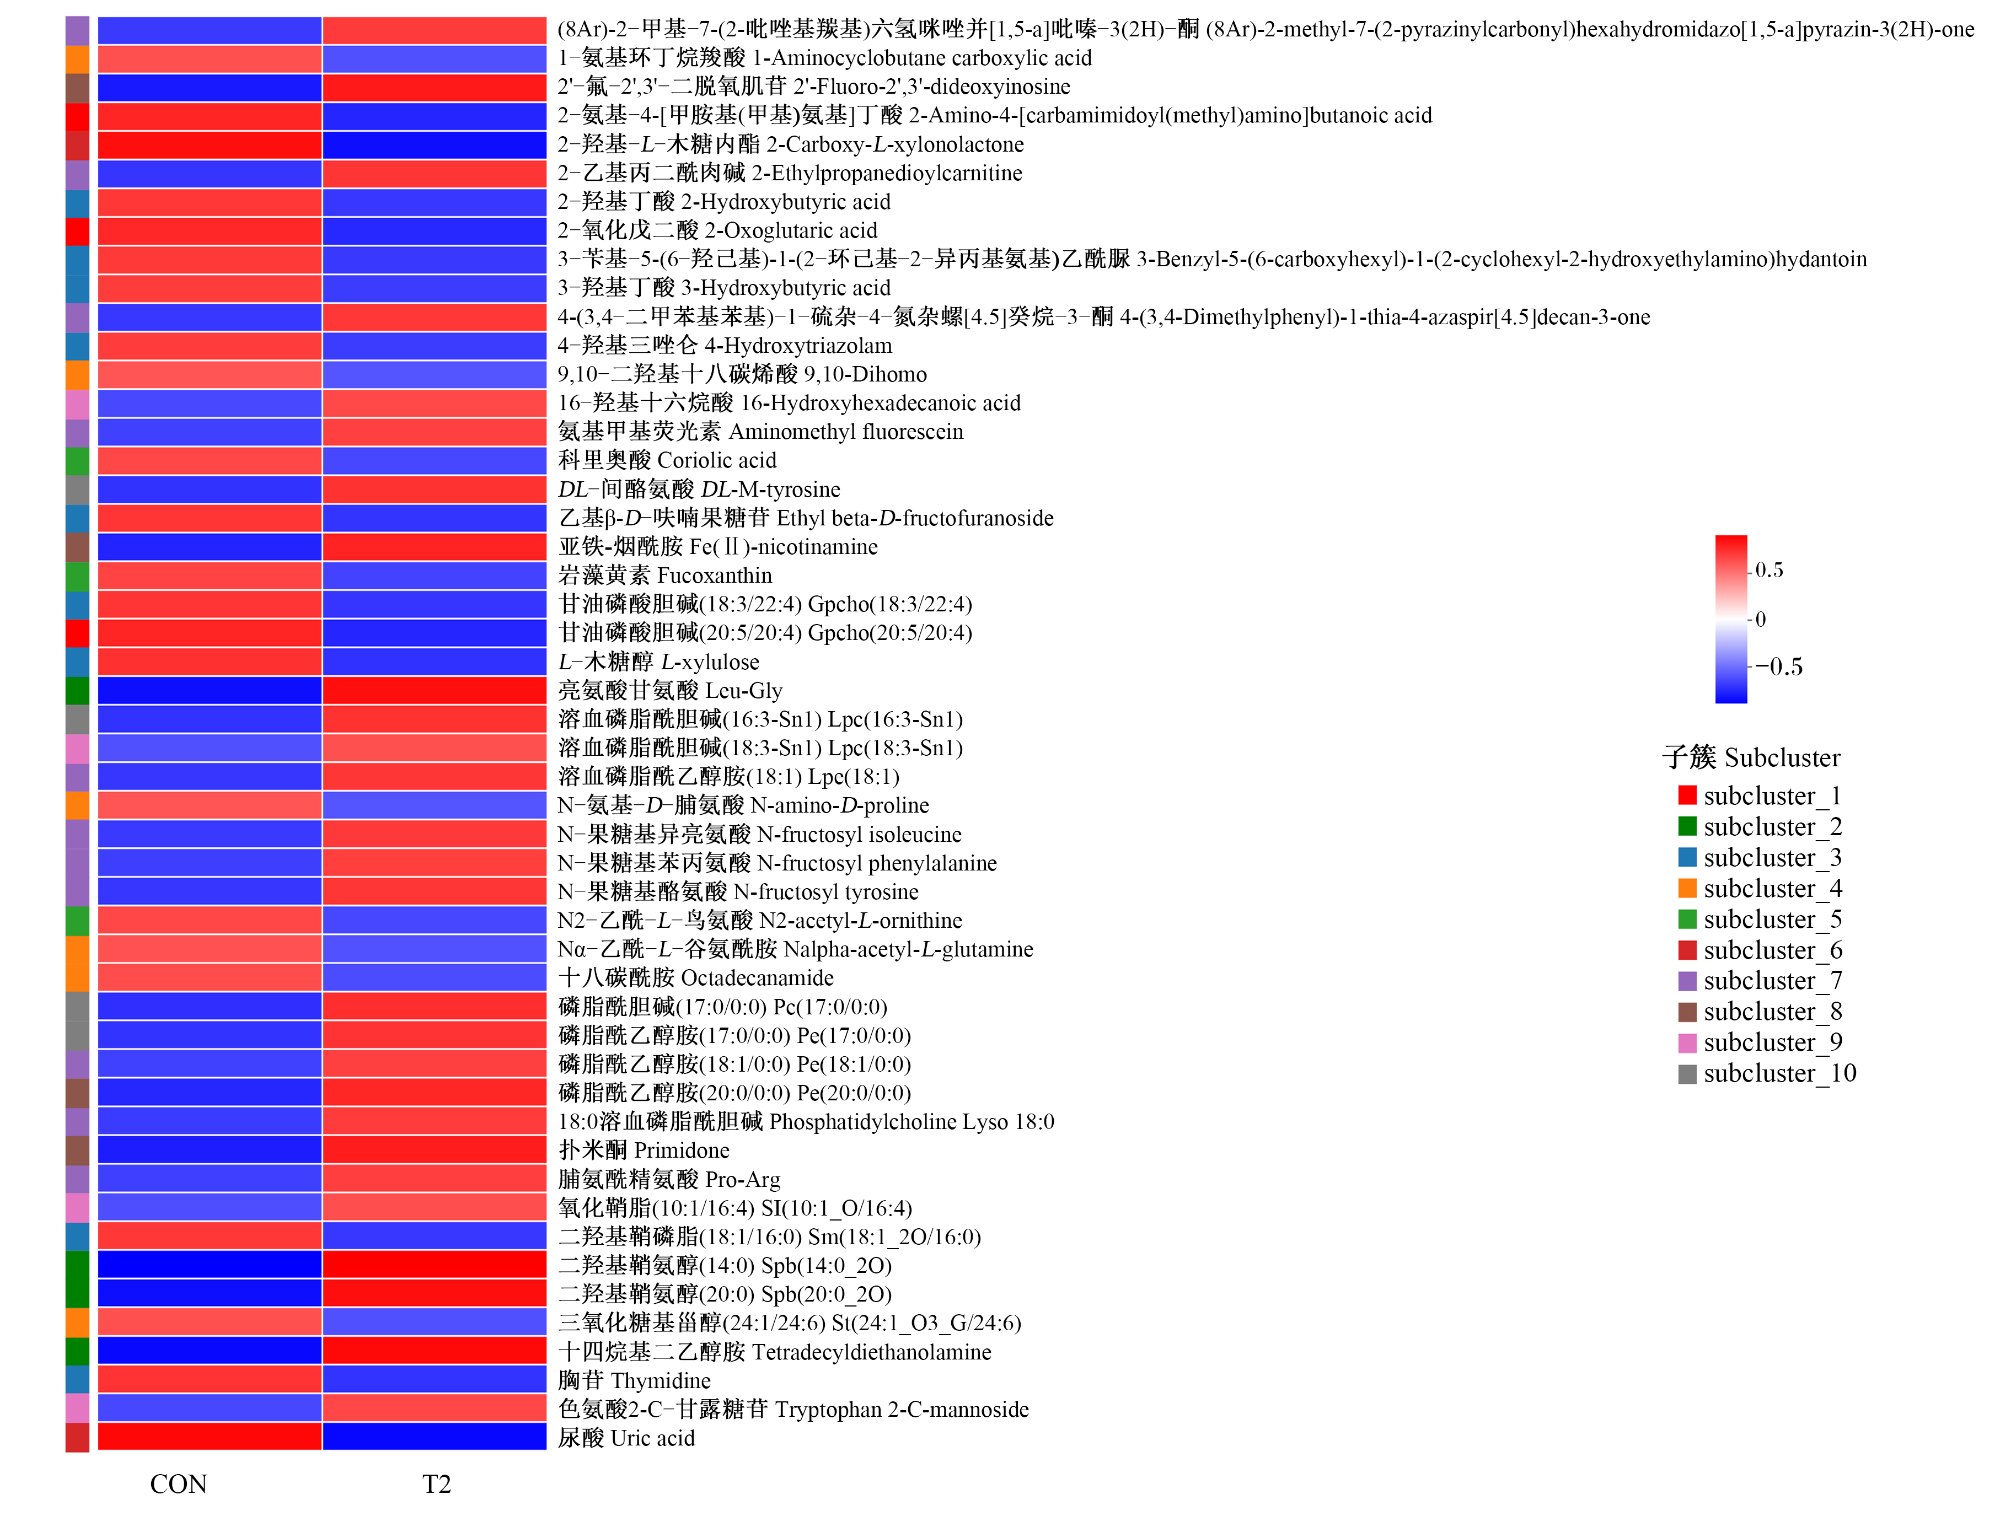
为直观展现各比较组差异代谢物的表达模式,采用层次聚类分析法对筛选出的血清差异代谢物进行分析,并绘制聚类热图,结果如图11图12图13所示。所有差异代谢物依据表达丰度变化相似性共划分为10个亚群(subcluster),同一亚群内代谢物上调、下调趋势完全一致。
图11 CON组vs T1组血清代谢物聚类热图

Fig.11 Cluster heatmaps of serum metabolites of CON group vs T1 group

图12 CON组vs T2组血清代谢物聚类热图

Fig.12 Cluster heatmaps of serum metabolites of CON group vs T2 group

图13 T1组vs T2组血清代谢物聚类热图

Fig.13 Cluster heatmaps of serum metabolites of T1 group vs T2 group

CON组vs T1组(图11)中,甘油磷酰胆碱(Gpcho)、2-氧代戊二酸(2-oxoglutaric acid)、尿酸(uric acid)等脂质、三羧酸循环相关代谢物以及N-乙酰-L-谷氨酰胺(N-acetyl-L-glutamine)、脯氨酰精氨酸(Pro-Arg)等氨基酸衍生物组间差异显著;绝大多数甘油磷脂、酮酸有机酸、修饰氨基酸及生物碱类物质,如多种亚型甘油磷酰胆碱、2-羟基丁酸(2-hydroxybutyric acid)、N-果糖基酪氨酸(N-fructosyl tyrosine)等在CON组显著上调、在T1组显著下调;仅少量嘌呤核苷、糖醇糖苷类物质的变化趋势相反,如1-甲基腺苷(1-methyladenosine)、色氨酸2-C-甘露糖苷(tryptophan 2-C-mannoside)在CON组显著下调,在T1组显著上调,2组代谢物上调、下调分布模式区分清晰。
CON组vs T2组(图12)中,组间差异显著的特征代谢物为溶血磷脂酰胆碱(Lpc)、岩藻黄素(fucoxanthin)、二羟基鞘氨醇(Spb)、3-羟基丁酸(3-hydroxybutyric acid)等脂质与酮体代谢物;糖基化氨基酸如N-果糖基异亮氨酸(N-fructosyl isoleucine)、N-果糖基苯丙氨酸(N-fructosyl phenylalanine)、N-果糖基酪氨酸(N-fructosyl tyrosine)等和核苷类物质如胸苷(thymidine)、尿酸等在CON组显著上调、在T2组显著下调,丰度分层界限清晰。
T1组vs T2组(图13)中,DL-精氨酸(DL-arginine)、肌酸(creatine)、环亮氨酸(cycloleucine)、4-甲基马尿酸(4-methylhippuric acid)等磷脂类物质和溶血磷脂酰肌醇(Lpi)、溶血磷脂酰胆碱、磷脂酰胆碱(Pc)等磷脂类物质组间差异显著;各类溶血磷脂、磷脂亚型在T1组显著下调、在T2组显著上调。

2.6.4 KEGG通路富集分析

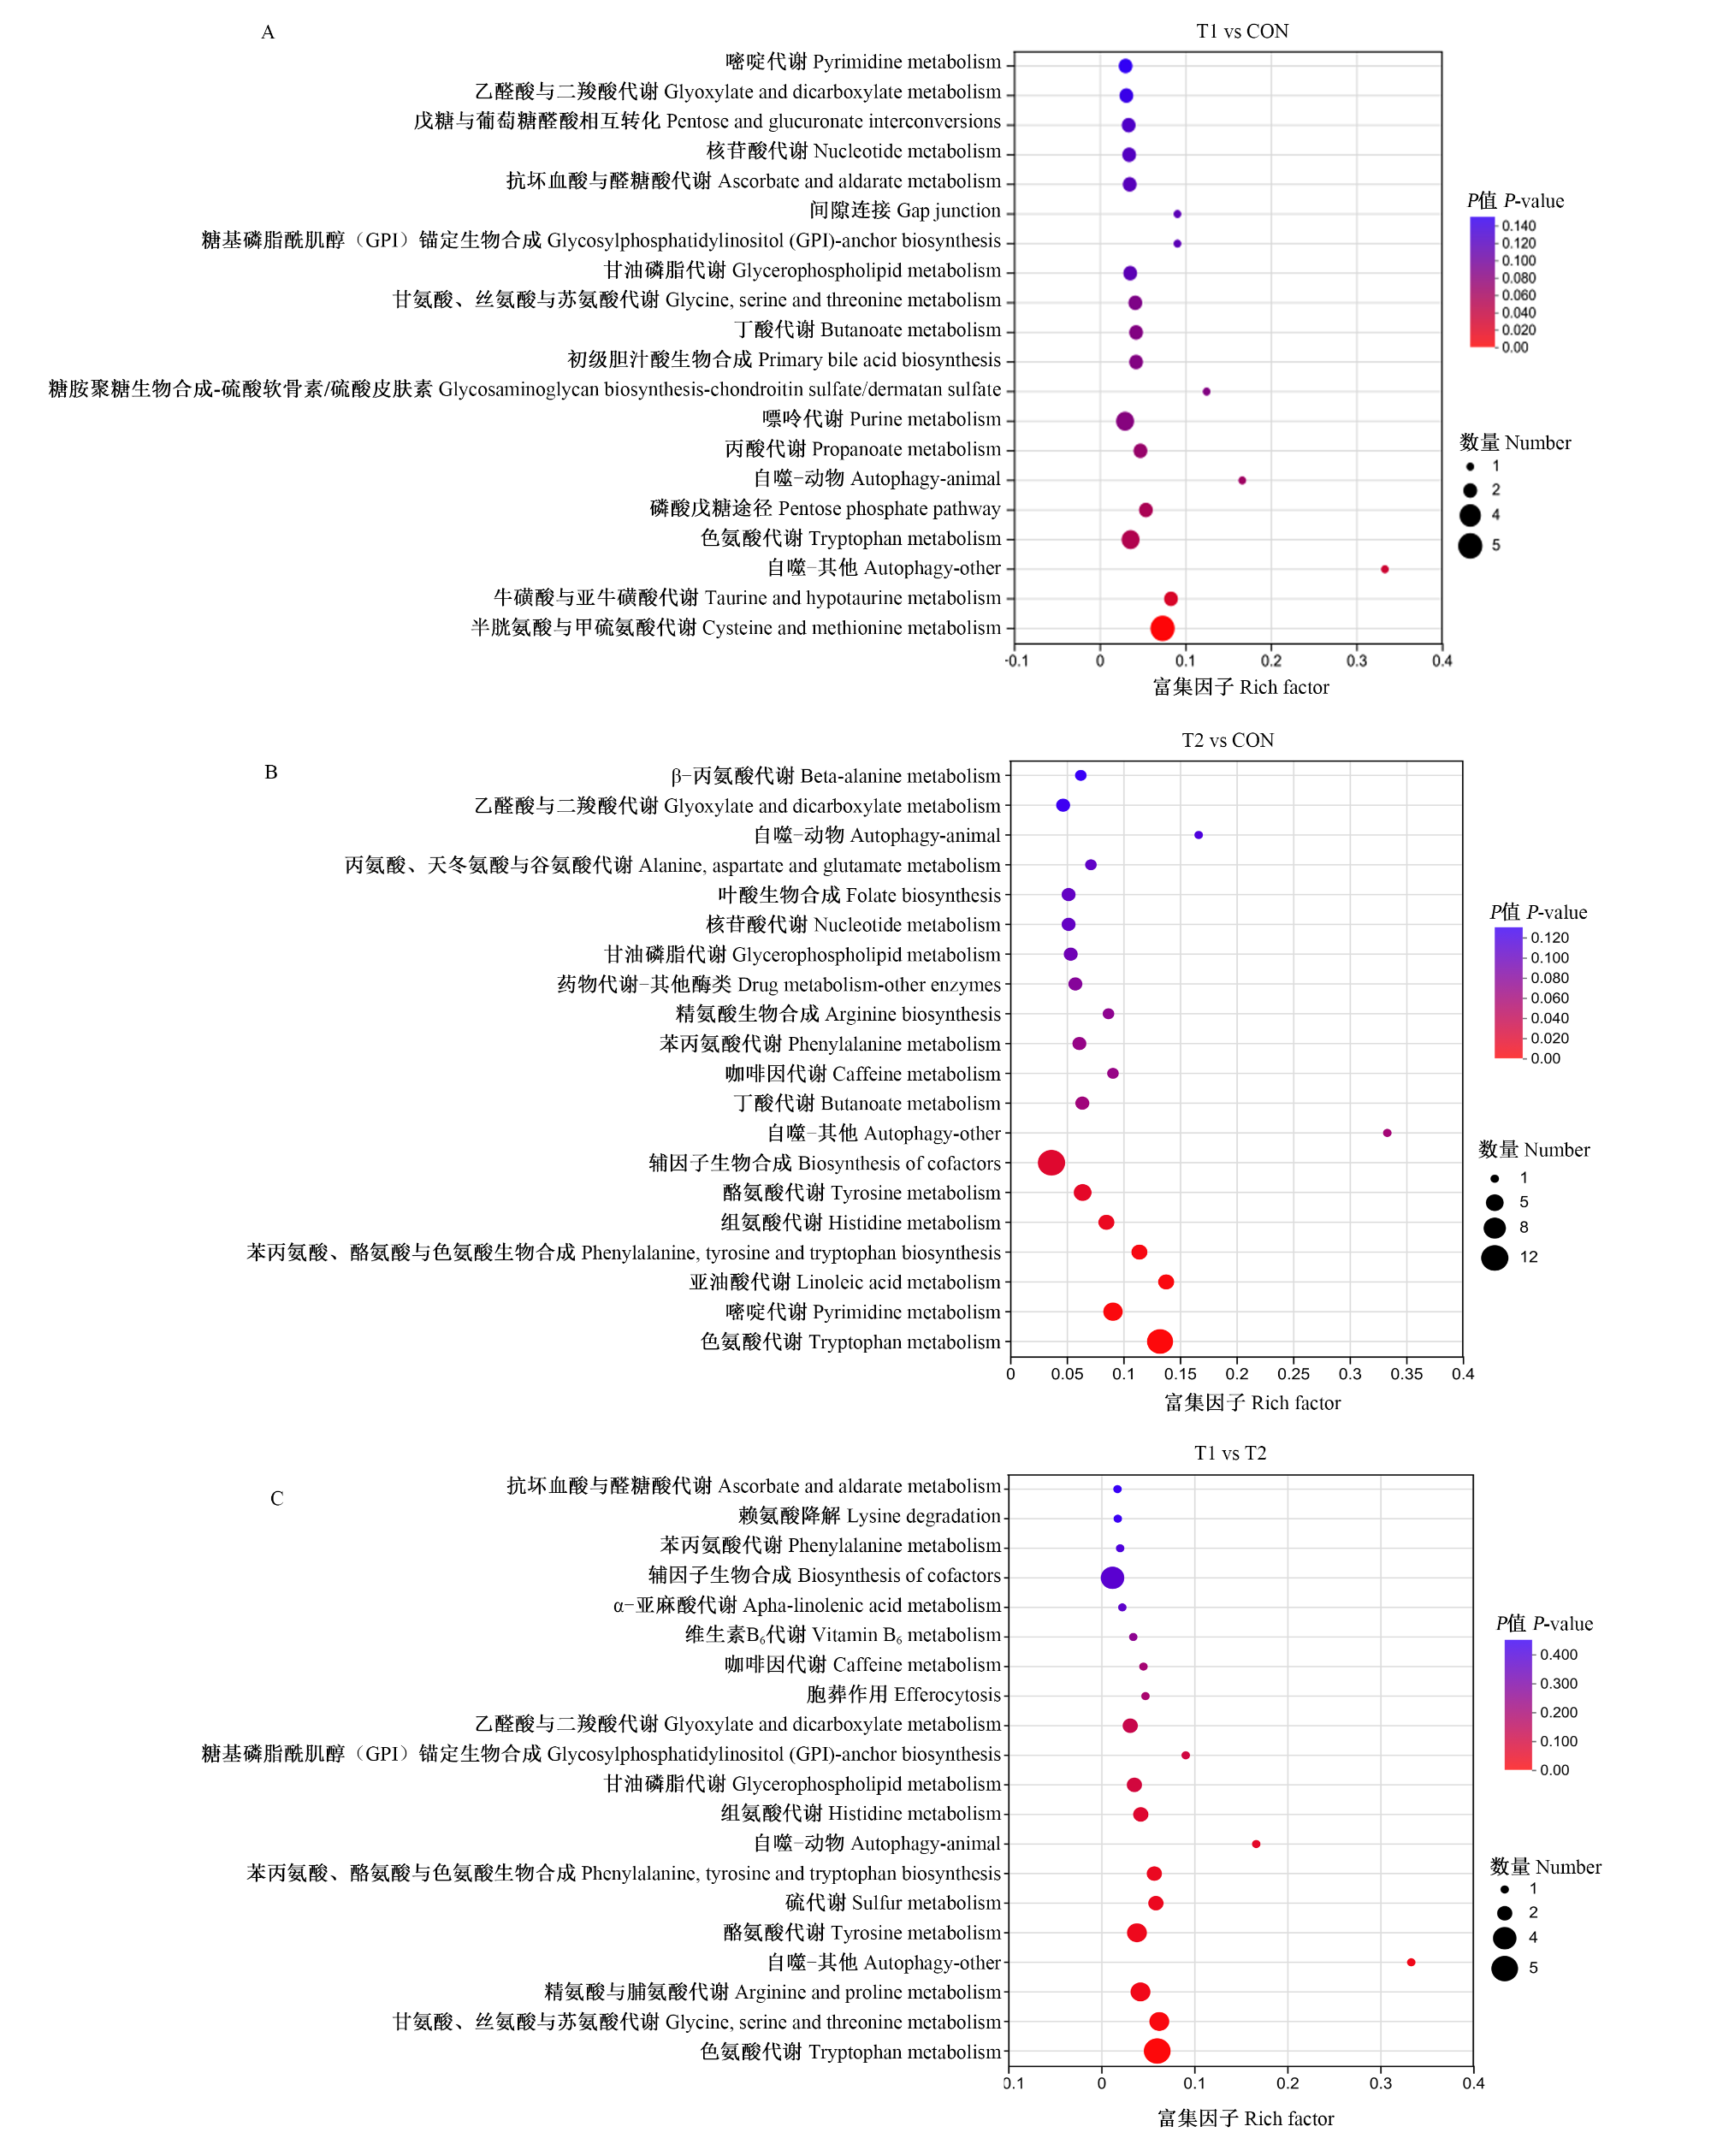
对各组间差异代谢物进行KEGG通路富集分析,结果如图14所示。3个组的差异代谢物主要显著富集于碳水化合物代谢、脂质代谢、氨基酸代谢三大类核心通路,其中乙醛酸与二羧酸代谢、甘油磷脂代谢、色氨酸代谢在3个组中均有富集。
图14 差异代谢物的KEGG通路富集分析

Fig.14 KEGG pathway enrichment analysis of differential metabolites

图14-A可知,T1组与CON组的差异代谢物显著富集的KEGG通路主要归属于碳水化合物代谢、脂质代谢、聚糖生物合成与代谢、氨基酸代谢、其他氨基酸代谢和核苷酸代谢等二级分类。其中,碳水化合物代谢相关通路包括乙醛酸与二羧酸代谢、戊糖与葡萄糖醛酸相互转化、磷酸戊糖途径、抗坏血酸与醛糖酸代谢、丁酸代谢和丙酸代谢;脂质代谢涉及甘油磷脂代谢和初级胆汁酸生物合成;聚糖生物合成与代谢包括糖基磷脂酰肌醇(GPI)锚定生物合成和糖胺聚糖生物合成-硫酸软骨素/硫酸皮肤素;氨基酸代谢涉及甘氨酸-丝氨酸-苏氨酸代谢、色氨酸代谢和半胱氨酸与甲硫氨酸代谢;牛磺酸与亚牛磺酸代谢归属于其他氨基酸代谢;全局与概览图涉及核苷酸代谢;核苷酸代谢涉及嘌呤代谢和嘧啶代谢。
图14-B可知,T2组与CON组的差异代谢物显著富集的KEGG通路主要归属于脂质代谢、氨基酸代谢、碳水化合物代谢、核苷酸代谢、辅因子与维生素代谢、外源物生物降解与代谢,以及其他次代谢产物生物合成等二级分类。其中,脂质代谢涉及甘油磷脂代谢和亚油酸代谢;氨基酸代谢涉及丙氨酸、天冬氨酸与谷氨酸代谢,精氨酸生物合成,色氨酸代谢,苯丙氨酸代谢,酪氨酸代谢,组氨酸代谢,苯丙氨酸、酪氨酸与色氨酸生物合成;β-丙氨酸代谢归属于其他氨基酸代谢;碳水化合物代谢涉及乙醛酸与二羧酸代谢和丁酸代谢;全局与概览图涉及核苷酸代谢和辅因子生物合成;核苷酸代谢涉及嘧啶代谢;辅因子与维生素代谢涉及叶酸生物合成;外源物生物降解与代谢涉及药物代谢-其他酶类;咖啡因代谢则归属于其他次代谢产物生物合成。
图14-C可知,T1组与T2组的差异代谢物显著富集的KEGG通路主要归属于脂质代谢、聚糖生物合成与代谢、氨基酸代谢、碳水化合物代谢、能量代谢、辅因子与维生素代谢、外源物生物降解与代谢,以及其他次生代谢产物生物合成等二级分类。其中,脂质代谢涉及甘油磷脂代谢和α-亚麻酸代谢;聚糖生物合成与代谢涉及GPI锚定生物合成;氨基酸代谢涉及甘氨酸、丝氨酸与苏氨酸代谢,色氨酸代谢,赖氨酸降解,精氨酸与脯氨酸代谢,苯丙氨酸代谢,组氨酸代谢,酪氨酸代谢,苯丙氨酸、酪氨酸与色氨酸生物合成;碳水化合物代谢涉及乙醛酸与二羧酸代谢和抗坏血酸与醛糖酸代谢;能量代谢涉及硫代谢;辅因子与维生素的代谢涉及维生素B6代谢;全局与概览图涉及辅因子生物合成;咖啡因代谢归属于其他次生代谢物的生物合成。

3 讨论

3.1 连续腹腔注射DQ对肉鸡生长性能的影响

生长性能是评估肉鸡健康状况与养殖效率的关键综合指标,也是摄入养分在体内消化吸收和沉积代谢的最终体现[24-25]。消化道损伤、免疫应激等因素均可导致营养吸收障碍,从而直接导致生长性能下降[24]。在肉鸡养殖中尤为重要。本研究发现,连续腹腔注射DQ可显著抑制肉鸡的生长性能,表现为体重增长减缓、ADFI与ADG下降以及F/G升高,这与先前的研究结果[21-22,26]一致。这是因为,DQ诱导的氧化应激会破坏抗氧化防御系统,损害肠道完整性和屏障功能[27],降低肠道中有益菌丰度,抑制肠道对营养物质的吸收[28],最终导致动物生长性能下降[29]。本研究中,DQ对肉鸡生长性能的抑制作用随着日龄的增长呈现差异性:1~21日龄阶段,DQ对各项生长指标的抑制作用尤为明显,提示幼龄肉鸡对氧化应激更为敏感;22~42日龄阶段,尽管采食量仍受抑制,但2个试验组的ADG和F/G与CON组无显著差异,这可能意味着随着日龄增加,机体逐渐适应并对氧化应激的抵抗增强。然而,从整个试验周期(1~42日龄)来看,DQ引起的氧化损伤对肉鸡生长性能的负面影响具有持续性和累积性,最终导致42日龄体重显著降低。在1~42日龄阶段T1、T2组ADG均显著低于CON组、F/G显著高于CON组,但22~42日龄阶段T2组ADFI低于T1组,且T2组42日龄体重最低。上述结果说明,氧化应激对增重、饲料转化的抑制效应在T2组持续存在,而T1组后期机体代偿效应明显,损伤表型弱化,无法形成稳定、全程持续的生长抑制表型,不符合慢性应激长期损伤特征。

3.2 连续腹腔注射DQ对肉鸡肝脏的影响

ALT与AST是反映肝细胞损伤的特异性生物标志物,正常生理状态下主要定位于肝细胞内;当肝细胞受损时,细胞膜通透性增加,胞内酶大量释放至血液中,导致血清中这2种酶的活性升高[14,30]。本研究中发现,DQ剂量与采样时间对肉鸡血清中AST和ALT活性均存在显著的交互作用,表现为随着注射次数的增加,高剂量DQ对肝细胞的损伤效应逐渐增强;至42日龄时,T2组血清中AST活性仍显著高于CON组,提示肝脏损伤具有累积性。这一结果与Nong等[31]报道的DQ可显著升高文昌鸡血清中AST、ALT活性的研究结论一致,也与Yang等[32]在脂多糖联合DQ诱导肉鸡氧化应激的研究中观察到的血清中ALT活性升高的现象相符。肝脏组织病理学观察发现,T2组出现较多肝细胞脂肪变性,据此推测DQ可能通过破坏线粒体结构与功能,诱导大量ROS生成,引发肝细胞能量代谢紊乱,最终导致肝细胞结构破坏与功能异常。本研究采用连续多次腹腔注射DQ方式,模拟了生产中常见的慢性应激过程,末次给药后4 d(42日龄)T2组肝细胞损伤标志物仍维持在较高水平,肝脏累积氧化损伤程度强于T1组,造模损伤更稳定、持久,肉鸡血清中转氨酶活性持续升高,这为慢性氧化应激模型的成功建立提供了可靠的生化证据。

3.3 连续腹腔注射DQ对肉鸡抗氧化能力的影响

在家禽氧化应激过程中,自由基的过量产生会降低抗氧化酶活性,削弱机体的自由基清除能力[14]。SOD和GSH-Px是机体对抵抗氧化应激的核心酶类[33],T-AOC反映了机体的综合抗氧化状态,而MDA含量则是脂质过氧化损伤程度的敏感指标。本研究发现,DQ处理可降低肉鸡血清、肝脏及空肠中SOD、GSH-Px活性与T-AOC,并升高MDA含量,该结果与Sun等[5]、胡月等[19]的研究结果一致。DQ剂量与采样时间对肉鸡血清中抗氧化指标均存在显著的交互作用,这表明不同剂量DQ对机体抗氧化能力的影响随日龄变化呈现出不同的变化轨迹。其中,T2组血清中SOD和GSH-Px活性在多次注射后持续处于较低水平,而MDA含量在27日龄达峰值后仍维持较高水平,至42日龄仍未恢复至正常水平,表明长期的氧化应激持续消耗抗氧化物质,最终导致抗氧化防御系统耗竭、脂质过氧化损伤持续加重。类似地,李敏[20]对蛋鸡一次性腹腔注射8 mg/kg BW DQ后,观察到血清中SOD、GSH-Px活性及T-AOC显著降低,MDA含量显著增加;Wu等[34]对1日龄雄性科宝肉鸡腹腔注射20 mg/kg BW DQ,发现可显著降低肝脏中的T-AOC,显著增加MDA含量;Chen等[14]的研究显示,注射DQ降低了肉鸡血浆中SOD活性和肝脏中GSH含量,增加了血浆和肝脏中MDA积累。
从分子机制上来看,Nrf2作为抗氧化应答通路的关键调控元件,在机体氧化应激防御体系中发挥核心介导作用,可调控下游HO-1、SOD2等抗氧化基因表达,增强机体清除ROS能力[35-36]。HO-1作为关键抗氧化蛋白,可通过介导血红素降解反应,生成具有抗氧化活性的代谢产物胆绿素,有效清除过量ROS,从而发挥抗氧化作用[37-38]。而SOD2表达的下调则直接削弱线粒体ROS清除效率,加剧细胞内氧化应激水平[39]。PINK1作为线粒体自噬的关键介导分子,能够通过清除受损线粒体降低ROS的产生量,其表达异常通常预示线粒体质量控制功能失灵[40],机体抗氧化能力被削弱,进而诱发氧化损伤。本研究中,相较于CON组,T2组肝脏和空肠中Nrf2、HO-1、SOD2的mRNA相对表达量显著下调,PINK1的mRNA相对表达量显著上调,这与DQ作为强效氧化应激诱导剂的特性高度一致[41]。据此推测,DQ诱导产生的过量ROS可能直接损伤Nrf2信号通路的转录调控过程,抑制抗氧化基因表达;同时导致线粒体损伤累积,进一步加剧氧化应激反应,形成恶性循环,最终引发机体系统性氧化损伤。
值得注意的是,本研究末次给药时间为38日龄,与42日龄采样时间间隔4 d,此时血清生化指标的改变并非急性应答,而是多次给药的累积效应。42日龄时,进行DQ处理的2个试验组血清中转氨酶活性和抗氧化能力仍未恢复正常,且T2组抗氧化能力低于T1组,表明机体尚未恢复,仍处于持续氧化损伤状态,慢性氧化应激模型的构建成功。

3.4 连续腹腔注射DQ对肉鸡肠道健康的影响

肠道是肉鸡进行营养吸收与免疫防御的关键场所,其结构的完整性主要通过绒毛和隐窝的形态来评估[41]。VH增加可扩大肠道吸收表面积,CD减少则反映上皮细胞分化成熟度提高,二者共同影响营养物质吸收效率[42]。本研究中,进行DQ处理的2个试验组空肠VH和VH/CD显著降低,CD显著升高,这与Xu等[18]报道的DQ暴露显著降低肉鸡空肠VH与VH/CD、升高CD的研究结果一致。空肠结构观察显示,T2组出现重度炎性浸润、大面积绒毛脱落、隐窝丢失等病理变化,表明5.0 mg/kg BW DQ诱导的氧化应激破坏了肠道黏膜结构完整性;T1组仅表现轻度黏膜水肿与少量绒毛脱落,肠道屏障损伤程度轻、病变不典型,表明2.5 mg/kg BW DQ无法模拟生产中长期应激造成的持续性肠道结构破坏。肠道菌群平衡对维持其屏障功能与免疫稳态至关重要。本试验结果表明,DQ处理显著改变肉鸡空肠微生物群落结构,有益菌(如Ligilactobacillus)相对丰度下降、致病菌(如Lawsonia)相对丰度上升,且T2组变化更为明显。这一现象可能与DQ诱导机体产生过量ROS,进而改变肠道微环境、影响肠道氧化还原稳态和营养物质代谢有关;上述变化会抑制有益菌增殖并促进致病菌定植,最终损害肠道屏障功能,影响肉鸡的消化吸收功能与健康。LEfSe分析结果显示,各组均未富集特定条件致病菌。这表明DQ诱导的氧化应激主要通过抑制肠道核心有益菌群来破坏菌群稳态,而非直接促进致病菌增殖;其机制在于,过量ROS改变了肠道的氧化还原稳态,抑制了Lactobacillus等兼性厌氧菌的增殖,进而打破菌群平衡。此外,相关性分析结果显示,Nrf2、HO-1等抗氧化基因的相对表达量与有益菌的相对丰度呈正相关,与致病菌的相对丰度呈负相关,表明肠道菌群与机体抗氧化系统存在双向调控关系,菌群失衡可能进一步削弱机体抗氧化能力,加重氧化损伤。

3.5 连续腹腔注射DQ对肉鸡血清代谢物的影响

非靶向代谢组学分析表明,DQ处理改变了肉鸡血清代谢谱,T2组共筛选486个差异代谢物,远多于T1组256个;差异代谢物主要富集于甘油磷脂代谢、精氨酸-脯氨酸代谢、乙醛酸与二羧酸代谢、丁酸代谢等通路,且在T2组富集程度更高、代谢物扰动范围更广。相较之下,T1组仅少量脂质、氨基酸代谢通路发生改变,代谢紊乱程度轻,无法形成全身性持续代谢重塑,难以还原慢性氧化应激下机体多物质代谢失衡的生理状态。
脂质代谢方面,甘油磷脂是细胞膜脂质双层的核心组成成分,维持细胞膜流动性、完整性与细胞信号传导功能。本研究中,DQ处理使大量溶血磷脂酰胆碱、磷脂酰胆碱等磷脂类差异代谢物发生显著变化,提示DQ诱导过量ROS持续攻击细胞膜脂质结构,导致细胞膜脂质代谢紊乱,进而诱发脂质过氧化反应[43-44],这与血清、肝脏、十二指肠中MDA含量显著升高的氧化损伤表型相互印证。氧化应激下细胞膜脂质稳态失衡会进一步破坏肝细胞、肠道上皮细胞结构完整性,对应本试验观察到的肝细胞脂肪变性、空肠绒毛萎缩脱落等组织病理学损伤。对比不同剂量DQ处理的2个试验组发现,T2组甘油磷脂代谢通路富集程度更高、差异代谢物数量更多,表明5.0 mg/kg BW DQ造成的细胞膜脂质损伤更严重。
氨基酸代谢方面,精氨酸-脯氨酸代谢通路发生扰动。精氨酸不仅是蛋白质合成的底物,更是多胺和一氧化氮(NO)合成的前体,参与调控肠道黏膜屏障功能与免疫反应[30],而脯氨酸对维持肠道上皮完整性至关重要。本试验中,DQ处理扰动了精氨酸-脯氨酸代谢通路,从代谢层面削弱了肠道屏障的修复能力和免疫稳态,解释了空肠VH降低、CD增加、VH/CD显著下降的肠道结构损伤;同时,肠道屏障受损会降低机体营养吸收效率,进一步抑制肉鸡生长性能。相较于T1组,T2组精氨酸-脯氨酸代谢通路扰动幅度更大,对应空肠黏膜炎性浸润加重、绒毛大量脱落的重度病理损伤,再次证实DQ的氧化损伤具有剂量依赖性。
乙醛酸与二羧酸代谢、丁酸代谢为本研究中的关键碳水化合物代谢通路,其中2-氧代戊二酸、3-羟基丁酸是与乙醛酸与二羧酸代谢、丁酸代谢相关的关键有机酸,两者与能量代谢过程密切相关。2-氧代戊二酸是谷胱甘肽合成的碳骨架前体,连接能量代谢与抗氧化稳态调控[45];3-羟基丁酸作为丁酸代谢通路的关键中间产物,是氧化应激状态下机体利用的重要酮体燃料,它在线粒体内氧化分解为乙酰辅酶A,进而汇入三羧酸循环,以补充能量代谢的底物供给[46]。差异代谢物聚类热图显示,DQ处理导致这2种有机酸发生显著紊乱,表明DQ诱导的氧化应激严重扰乱了机体的能量合成与物质代谢平衡。线粒体作为细胞能量代谢的核心场所,其结构与功能易受DQ过量产生的ROS的攻击,进而降低有氧呼吸效率并减少ATP生成,致使能量供给无法满足肉鸡正常生长发育需求[19]。这一代谢层面的变化,与本研究中DQ处理肉鸡生长性能下降、增重减缓的表型结果相一致。综合以上结果可知,血清代谢组结果从分子层面佐证了上述生长与组织学表型,揭示DQ通过诱发全身性氧化应激、干扰能量代谢通路稳态,导致肝脏、肠道等多器官结构与功能损伤,最终抑制肉鸡生长。本研究结果为阐明DQ慢性氧化损伤的内在毒性机制提供了代谢组学理论支撑。

4 结论

① 本试验于8、18、28、38日龄连续对肉鸡腹腔注射DQ,至42日龄时肉鸡仍处于累积性氧化损伤的持续期,表明成功构建了肉鸡慢性氧化应激模型,且适宜注射剂量为5.0 mg/kg BW。
② 连续注射DQ可产生以下效应:抑制肉鸡生长性能;降低机体抗氧化能力,并抑制肝脏和空肠中Nrf2/HO-1抗氧化信号通路核心基因的表达;损伤肠道健康,导致有益菌(如Ligilactobacillus)相对丰度下降和条件致病菌(如Lawsonia)相对丰度上升;干扰甘油磷脂代谢、精氨酸-脯氨酸代谢、乙醛酸与二羧酸代谢等关键代谢通路。
[1]
OKE O E, AKOSILE O A, ONI A I, et al. Oxidative stress in poultry production[J]. Poultry Science, 2024, 103(9):104003.

DOI

[2]
BACOU E, WALK C, RIDER S, et al. Dietary oxidative distress:a review of nutritional challenges as models for poultry,swine and fish[J]. Antioxidants, 2021, 10(4):525.

DOI

[3]
SHAH ALAM M, MAOWA Z, SUBARNA S D, et al. Mycotoxicosis and oxidative stress in poultry:pathogenesis and therapeutic insights[J]. World’s Poultry Science Journal, 2024, 80(3):791-820.

DOI

[4]
LEI C Q, HUO Y H, MA F Y, et al. Long-term copper exposure caused hepatocytes autophagy in broiler via miR-455-3p-OXSR1 axis[J]. Chemico-Biological Interactions, 2023, 369:110256.

DOI

[5]
SUN X T, LI J J, WANG Z H, et al. Protective effects of silymarin against diquat-induced hepatitis in layer by inhibiting oxidative stress and TLR4/Myd88/NF-κB signaling pathway[J]. Food and Chemical Toxicology, 2025, 204:115626.

DOI

[6]
SURAI P F, KOCHISH I I, FISININ V I, et al. Antioxidant defence systems and oxidative stress in poultry biology:an update[J]. Antioxidants, 2019, 8(7):235.

DOI

[7]
YANG J Y, LIU Y M, HU W, et al. Dietary supplementation with selenium yeast mitigates diquat-induced oxidative damage in oviductal magnum of hens[J]. Poultry Science, 2025, 104(11):105882.

DOI

[8]
WASTI S, SAH N, MISHRA B. Impact of heat stress on poultry health and performances,and potential mitigation strategies[J]. Animals, 2020, 10(8):1266.

DOI

[9]
CHEN Y N, CHEN Y P, ZHANG H, et al. Pterostilbene as a protective antioxidant attenuates diquat-induced liver injury and oxidative stress in 21-day-old broiler chickens[J]. Poultry Science, 2020, 99(6):3158-3167.

DOI PMID

[10]
CUI S Q, ZHANG X X, WANG C, et al. Study on the therapeutic effect of glucocorticoids on acute kidney injury in rats exposed to diquat[J]. Biomedicine & Pharmacotherapy, 2023, 166:115310.

DOI

[11]
LIU J B, ZHANG Y, LI Y, et al. L-tryptophan enhances intestinal integrity in diquat-challenged piglets associated with improvement of redox status and mitochondrial function[J]. Animals, 2019, 9(5):266.

DOI

[12]
YE H, WANG Y Y, ZHU H L, et al. Effects of short-term feeding of resveratrol on growth performance,meat quality,antioxidant capacity,serum biochemical parameters and intestinal health in yellow-feathered broilers under dexamethasone-induced oxidative stress[J]. Antioxidants, 2025, 14(12):1459.

DOI

[13]
SUNTRES Z E. Role of antioxidants in paraquat toxicity[J]. Toxicology, 2002, 180(1):65-77.

DOI PMID

[14]
CHEN Y P, GU Y F, ZHAO H R, et al. Dietary squalene supplementation alleviates diquat-induced oxidative stress and liver damage of broiler chickens[J]. Poultry Science, 2021, 100(3):100919.

DOI

[15]
LIU Z Q, LI Z Q, ZHENG Z, et al. Effects of L-theanine on intestinal morphology,barrier function,and MAPK signaling pathways in diquat-challenged piglets[J]. Animal Biotechnology, 2023, 34(4):1112-1119.

DOI

[16]
WANG M H, LIU L, LI J, et al. The extract from the stem and leaf of Paeonia lactiflora pall has demonstrated an anti-oxidative stress effect in alleviating diarrhea by regulating the gut-liver axis[J]. Antioxidants, 2025, 14(5):592.

DOI

[17]
ABO GHANIMA M M, ABD EL-HACK M E, OTHMAN S I, et al. Impact of different rearing systems on growth,carcass traits,oxidative stress biomarkers,and humoral immunity of broilers exposed to heat stress[J]. Poultry Science, 2020, 99(6):3070-3078.

DOI

[18]
XU G, WANG Z H, FAN A L, et al. Tea tree oil attenuates diquat-induced intestinal barrier dysfunction in chickens via modulating oxidative stress and gut microbiota[J]. Ecotoxicology and Environmental Safety, 2025, 303:119028.

DOI

[19]
胡月, 伊婷, 乔家运, 等. 敌草快诱导肉鸡氧化损伤模型的建立及其分子机制研究[J]. 畜牧兽医学报, 2024, 55(11):5101-5113.

DOI

HU Y, YI T, QIAO J Y, et al. Establishment and molecular mechanism study of diquat induced oxidative damage model in broilers chickens[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(11):5101-5113. (in Chinese)

DOI

[20]
李敏. 无抗饲料添加博落回对鸡生长性能影响及作用机制研究[D]. 硕士学位论文. 绵阳: 西南科技大学,2021:20-25.

LI M. Effect of Macleaya cordata on growth performance of chicken and its mechanism in antibiotic free diet[D]. Master’s Thesis. Mianyang: Southwest University of Science and Technology,2021:20-25. (in Chinese)

[21]
李驰, 闫峻, 穆淑琴, 等. 一次性腹腔注射Diquat诱导构建肉仔鸡慢性氧化应激模型[J]. 西北农业学报, 2017, 26(4):509-513.

LI C, YAN J, MU S Q, et al. The construction model of chronic oxidative stress in broilers induced by intraperitoneal injection of diquat[J]. Acta Agriculturae Boreali-Occidentalis Sinica, 2017, 26(4):509-513. (in Chinese)

[22]
白冬红, 陈甜甜, 孙尹双, 等. 敌草快诱导的氧化应激对肉鸡生产性能、肝脏功能、免疫功能和抗氧化性能的影响[J]. 中国兽医杂志, 2024, 60(3):58-65.

BAI D H, CHEN T T, SUN Y S, et al. Effects of diquat-induced oxidative stress on performance,liver function,immune function and antioxidant capacity of broilers[J]. Chinese Journal of Veterinary Medicine, 2024, 60(3):58-65. (in Chinese)

[23]
BOULESTEIX A L, STRIMMER K. Partial least squares:a versatile tool for the analysis of high-dimensional genomic data[J]. Briefings in Bioinformatics, 2007, 8(1):32-44.

DOI

[24]
柴露露, 姚文倩, 杨垚, 等. 慢性热应激致肉鸡肠道损伤的作用机制研究[J]. 西南大学学报(自然科学版), 2026, 48(6):94-105.

CHAI L L, YAO W Q, YANG Y, et al. Study on the mechanism of intestinal injury induced by chronic heat stress in broilers[J]. Journal of Southwest University,(Natural Science Edition) 2026, 48(6):94-105. (in Chinese)

[25]
周思源, 江皓天, 赵紫茵, 等. 异绿原酸对肉鸡生长性能、肠道结构、免疫性能及微生物多样性的影响[J]. 饲料研究, 2024, 47(9):54-60.

ZHOU S Y, JIANG H T, ZHAO Z Y, et al. Effects of isochlorogenic acid on growth performance,intestinal structure,immune performance and microbial diversity in broilers[J]. Feed Research, 2024, 47(9):54-60. (in Chinese)

[26]
YANG S, HUO M, SU Z X, et al. The impact of dietary supplementation of quercetagetin on growth,antioxidant capacity,and gut microbiota of diquat-challenged broilers[J]. Frontiers in Microbiology, 2024, 15:1453145.

DOI

[27]
CAO S, SHEN Z, WANG C, et al. Resveratrol improves intestinal barrier function,alleviates mitochondrial dysfunction and induces mitophagy in diquat challenged piglets[J]. Food & Function, 2019, 10(1):344-354.

[28]
YIN J, LIU M F, REN W K, et al. Effects of dietary supplementation with glutamate and aspartate on diquat-induced oxidative stress in piglets[J]. PLoS One, 2015, 10(4):e0122893.

DOI

[29]
ZHA P P, WEI L Y, LIU W H, et al. Effects of dietary supplementation with chlorogenic acid on growth performance,antioxidant capacity,and hepatic inflammation in broiler chickens subjected to diquat-induced oxidative stress[J]. Poultry Science, 2023, 102(3):102479.

DOI

[30]
FOUAD A M, EL-SENOUSEY H K, YANG X J, et al. Dietary L-arginine supplementation reduces abdominal fat content by modulating lipid metabolism in broiler chickens[J]. Animal, 2013, 7(8):1239-1245.

DOI PMID

[31]
NONG K Y, LIU Y M, FANG X, et al. Effects of the vitamin D3 on alleviating the oxidative stress induced by diquat in Wenchang chickens[J]. Animals, 2023, 13(4):711.

DOI

[32]
YANG W B, LIU X H, CHEN G F, et al. Induction of hepatic immuno-oxidative stress in broilers by co-exposure to lipopolysaccharide and diquat:an integrated phenotypic and transcriptomic investigation[J]. Poultry Science, 2026, 105(2):106235.

DOI

[33]
SIES H. Oxidative stress:a concept in redox biology and medicine[J]. Redox Biology, 2015, 4:180-183.

DOI

[34]
WU F Y, YANG X Y, WANG F X, et al. Dietary curcumin supplementation alleviates diquat-induced oxidative stress in the liver of broilers[J]. Poultry Science, 2023, 102(12):103132.

DOI

[35]
BELLEZZA I, GIAMBANCO I, MINELLI A, et al. Nrf2-Keap1 signaling in oxidative and reductive stress[J]. Biochimica et Biophysica Acta:Molecular Cell Research, 2018, 1865(5):721-733.

DOI

[36]
CHEN C J, HAN X, WANG G, et al. Nrf2 deficiency aggravates the kidney injury induced by subacute cadmium exposure in mice[J]. Archives of Toxicology, 2021, 95(3):883-893.

DOI PMID

[37]
RYTER S W, CHOI A M K. Targeting heme oxygenase-1 and carbon monoxide for therapeutic modulation of inflammation[J]. Translational Research, 2016, 167(1):7-34.

DOI PMID

[38]
LI J J, DAI W Q, MO W H, et al. Fucoidan ameliorates ferroptosis in ischemia-reperfusion-induced liver injury through Nrf2/HO-1/GPX4 activation[J]. Journal of Clinical and Translational Hepatology, 2023, 11(6):1341-1354.

[39]
FUKAI T, USHIO-FUKAI M. Superoxide dismutases:role in redox signaling,vascular function,and diseases[J]. Antioxidants & Redox Signaling, 2011, 15(6):1583-1606.

[40]
PICKRELL A M, YOULE R J. The roles of PINK1,Parkin,and mitochondrial fidelity in Parkinson’s disease[J]. Neuron, 2015, 85(2):257-273.

DOI

[41]
HE C, CAI G R, JIA Y M, et al. Effect of diquat on gut health:molecular mechanisms,toxic effects,and protective strategies[J]. Frontiers in Pharmacology, 2025, 16:1562182.

DOI

[42]
YANG S B, QIN Y J, MA X, et al. Effects of in ovo injection of Astragalus polysaccharide on the intestinal development and mucosal immunity in broiler chickens[J]. Frontiers in Veterinary Science, 2021, 8:738816.

DOI

[43]
BURK R F, HILL K E, AWAD J A, et al. Pathogenesis of diquat-induced liver necrosis in selenium-deficient rats:assessment of the roles of lipid peroxidation and selenoprotein P[J]. Hepatology, 1995, 21(2):561-569.

[44]
ZHANG L F, WEI W, XU J M, et al. Inhibitory effect of melatonin on diquat-induced lipid peroxidation in vivo as assessed by the measurement of F2-isoprostanes[J]. Journal of Pineal Research, 2006, 40(4):326-331.

DOI

[45]
廖洁, 李涛, 甘尚权, 等. 谷氨酰胺及其前体物α-酮戊二酸的生物学功能及在动物生产中的应用[J]. 动物营养学报, 2025, 37(6)3595-3605.

DOI

LIAO J, LI T, GAN S Q, et al. Biological functions of glutamine and its precursor α-ketoglutarate and their applications in animal production[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):3595-3605. (in Chinese)

DOI

[46]
CHU Y X, ZHANG C, XIE M. Beta-hydroxybutyrate, friend or foe for stressed hearts[J]. Frontiers in Aging, 2021, 2:681513.

DOI

文章导航

/