研究论文

基于微生物组学和代谢组学探究丁酸梭菌对高脂饲粮诱导小鼠肥胖的调控作用

  • 邵涛洪 , 1 ,
  • 孔令航 1 ,
  • 牛含玉 1 ,
  • 张艳 2 ,
  • 吴银良 2 ,
  • 马灵燕 1 ,
  • 肖英平 1 ,
  • 温洋 , 1, *
展开
  • 1 浙江省农业科学院农产品质量安全与营养研究所, 农产品质量安全全国重点实验室, 杭州 310021
  • 2 宁波市农业科学研究院, 宁波 315040
* 温 洋,助理研究员,E-mail:

邵涛洪(2000—),女,浙江绍兴人,硕士研究生,从事畜禽肠道微生物研究。E-mail:

Office editor: 靳爽

收稿日期: 2025-12-12

  网络出版日期: 2026-09-12

基金资助

浙江省杰出青年科学基金项目(LR25C170001)

农产品质量安全全国重点实验室开放课题(10417000025CE0615G)

Exploring the Regulatory Role of Clostridium butyricum on High-Fat Diet-Induced Obesity in Mice Based on Microbiomics and Metabolomics

  • SHAO Taohong , 1 ,
  • KONG Linghang 1 ,
  • NIU Hanyu 1 ,
  • ZHANG Yan 2 ,
  • WU Yinliang 2 ,
  • MA Lingyan 1 ,
  • XIAO Yingping 1 ,
  • WEN Yang , 1, *
Expand
  • 1 State Key Laboratory of Hazard Factors and Risk Prevention and Control of Agricultural Product Quality and Safety, Institute of Agro-Product Safety and Nutrition, Zhejiang Academy of Agricultural Sciences, Hangzhou 310021, China
  • 2 Ningbo Academy of Agricultural Sciences, Ningbo 315040, China
* assistant professor, E-mail:

Received date: 2025-12-12

  Online published: 2026-09-12

摘要

本试验旨在通过微生物组学和代谢组学探究丁酸梭菌对高脂饲粮诱导肥胖小鼠粪便菌群与代谢物的影响。选取24只4周龄无特定病原体(SPF)级ICR雌鼠,随机分为2组:对照组(CON组,n=12),饲喂标准饲粮;高脂组(HFD组,n=12),饲喂高脂饲粮,以构建肥胖小鼠模型。建模成功(8周)后,将CON组和HFD组各分为2个亚组:标准饲粮+生理盐水组(CS组,n=6)、标准饲粮+丁酸梭菌组(CB组,n=6)、高脂饲粮+生理盐水组(HS组,n=6)和高脂饲粮+丁酸梭菌组(HB组,n=6)。4个亚组进行4周灌胃处理,其中CS组和HS组每日灌胃200 μL生理盐水,CB组和HB组每日灌胃200 μL丁酸梭菌菌液,灌胃期间各组小鼠维持原有饲粮模式。分别于灌胃开始时(第0周)、第2周、第4周收集小鼠粪便样品,用于微生物组与代谢组检测。结果表明:1)丁酸梭菌干预第2周和第4周HB组小鼠体重显著低于HS组(P<0.05)。与CON组相比,HFD组扩增子序列变体(ASV)数量、Chao1和Shannon指数显著降低(P<0.05);经丁酸梭菌干预后,HB组粪便菌群丰富度与多样性较HS组呈回升趋势。与HS组相比,HB组布劳特氏菌属(Blautia)、乳球菌属(Lactococcus)等有益菌显著富集。代谢组学分析显示,与HS组相比,HB组粪便中L-肉碱、L-色氨酸、琥珀酸、1H-吲哚-3-乙酰胺等代谢物的相对含量显著提高(P<0.05),且差异代谢物主要富集于花生四烯酸代谢、精氨酸生物合成、亚油酸代谢等通路。2)与CS组相比,CB组小鼠体重无显著变化(P>0.05);CB组罗斯氏菌属(Roseburia)和克里斯滕森氏菌科未培养菌属(Christensenellaceae_uncultured)等潜在有益菌及己酸、L-谷氨酸等代谢物显著富集,且差异代谢物主要富集于赖氨酸降解、精氨酸生物合成等通路。综上所述,丁酸梭菌干预能够促进小鼠粪便中多种有益菌群富集,重塑代谢物谱并调控相关功能通路,从能量代谢、抗炎稳态、脂质代谢多个层面改善高脂饲粮诱导的小鼠肥胖,并可在标准饲粮条件下维持机体正常代谢稳态。

本文引用格式

邵涛洪 , 孔令航 , 牛含玉 , 张艳 , 吴银良 , 马灵燕 , 肖英平 , 温洋 . 基于微生物组学和代谢组学探究丁酸梭菌对高脂饲粮诱导小鼠肥胖的调控作用[J]. 动物营养学报, 2026 , 38(9) : 7025 -7037 . DOI: 10.12418/CJAN2026.560

Abstract

This experiment was conducted to investigate the effects of Clostridium butyricum on fecal microbiota and metabolites in high-fat diet-induced obese mice using microbiomics and metabolomics. A total of 24 four-week-old specific pathogen-free (SPF) female ICR mice were randomly divided into two groups: control group (CON group, n=12) fed a standard diet, and high-fat group (HFD group, n=12) fed a high-fat diet to establish an obese mouse model. After successful modeling (8 weeks), mice in CON and HFD groups were each subdivided into two subgroups: standard diet+normal saline group (CS group, n=6), standard diet+Clostridium butyricum group (CB group, n=6), high-fat diet+normal saline group (HS group, n=6), and high-fat diet+Clostridium butyricum group (HB group, n=6). The four subgroups received 4 weeks of intragastric administration, during which mice in CS and HS groups were intragastrically given 200 μL normal saline every day, while mice in CB and HB groups received 200 μL Clostridium butyricum bacterial suspension daily. All mice maintained their original feeding regimens during administration. Fecal samples were collected at the initiation of gavage (week 0), week 2 and week 4 for microbiome and metabolome detection. The results showed as follows: 1) at week 2 and week 4 of intervention, the body weight of mice in HB group was significantly lower than that in HS group (P<0.05). Compared with the CON group, the amplicon sequence variants (ASV) number, Chao1 and Shannon indexes in the HFD group were significantly decreased (P<0.05). After intervention with Clostridium butyricum, the richness and diversity of fecal microbiota in HB group showed an upward trend compared with HS group. Compared with HS group, HB group was significantly enriched with beneficial bacteria including Blautia and Lactococcus (P<0.05). Metabolomic analysis showed that compared with HS group, HB group exhibited significantly increased relative contents of metabolites including L-carnitine, L-tryptophan, succinic acid and 1H-indole-3-acetamide in feces (P<0.05), and the differential metabolites were mainly enriched in arachidonic acid metabolism, arginine biosynthesis and linoleic acid metabolism pathways. 2) Compared with CS group, the body weight of mice in CB group showed no significant change (P>0.05). Potential beneficial bacteria such as Roseburia and Christensenellaceae_uncultured, as well as metabolites including caproic acid and L-glutamic acid were significantly enriched in CB group, and the differential metabolites were mainly enriched in lysine degradation and arginine biosynthesis pathways. In conclusion, Clostridium butyricum intervention facilitates the enrichment of various beneficial bacteria in mouse feces, remodels metabolite profiles and regulates related functional pathways. It alleviates high-fat diet-induced obesity in mice by modulating energy metabolism, anti-inflammatory homeostasis and lipid metabolism, and maintains normal metabolic homeostasis under standard diet conditions.

肥胖不仅是威胁人类健康的全球性公共问题,也是影响畜禽养殖产业可持续发展的关键问题[1-2]。肠道菌群在维持机体健康方面发挥着核心作用,而肥胖会引发肠道微生态失衡,具体表现为厚壁菌门(Firmicutes)与拟杆菌门(Bacteroidota)比例失调,丹毒丝菌属(Erysipelothrix)、放线菌属(Actinomyces)等有害菌过度增殖与定植,拟杆菌属(Bacteroides)、乳杆菌属(Lactobacillus)等有益菌相对丰度降低,进而扰乱肠道菌群介导的代谢调控网络[3-5]。这种菌群失衡与代谢紊乱的协同作用会进一步通过破坏肠道屏障完整性,增加代谢性疾病的发生风险[6]
研究表明,益生菌具有改善肥胖的作用,可减轻肥胖和代谢综合征[7-8]。在众多潜在抗肥胖的益生菌中,丁酸梭菌(Clostridium butyricum,CB)作为革兰氏阳性厌氧益生菌,已在畜禽健康养殖中展现出良好的应用潜力。丁酸梭菌的代谢产物丁酸是肠道上皮细胞的能量来源,对维持肠道屏障完整性至关重要;同时,该菌株可抑制大肠杆菌等致炎菌增殖,促进双歧杆菌等有益菌生长,进而调节肠道微生态结构,最终实现促进动物生长、降低脂肪沉积的效果[9-12]。基于此,本研究以高脂饲粮诱导的肥胖小鼠为模型,探究丁酸梭菌对小鼠粪便菌群及代谢物的影响,旨在从微生物组学与代谢组学层面系统揭示其改善肥胖的作用途径,为动物养殖中益生菌的应用提供理论依据。

1 材料与方法

1.1 试验材料与动物

本试验所用丁酸梭菌为丁酸梭菌Miyairi 588菌株,活菌数为1×10⁸ CFU/mL;标准饲粮(货号:D12450J,脂肪供能比为10%,蛋白质供能比为20%,碳水化合物供能比为70%,代谢能水平为16.10 MJ/kg)和高脂饲粮(货号:D12492,高脂饲粮脂肪供能比为60%,蛋白质供能比为20%,碳水化合物供能比为20%,代谢能水平为21.92 MJ/kg)均购自美国Research Diets公司;无特定病原体(SPF)级雌性ICR小鼠购自上海斯莱克实验动物有限责任公司。

1.2 试验设计

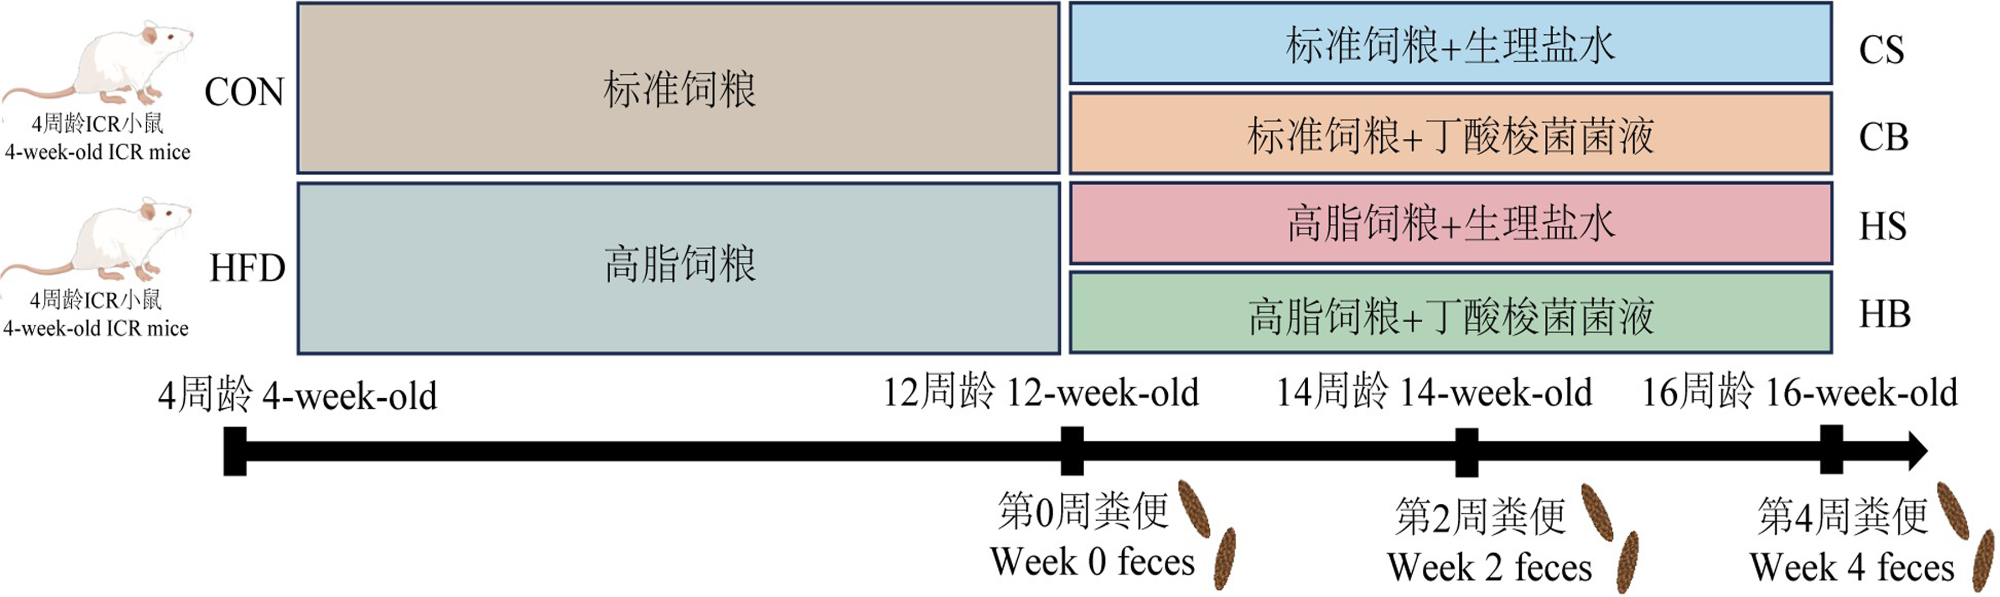
动物试验程序经浙江省农业科学院实验动物福利伦理委员会批准(批准号:2024ZAASLA057)。选取24只4周龄、体重[(19.38±0.09) g]相近的SPF级雌性ICR小鼠,采用12 h光照和12 h黑暗循环光周期,单笼饲养于温控室,环境温度控制在(23±2) ℃。将24只小鼠随机分为2组:对照组(CON组,n=12),饲喂标准饲粮;高脂组(HFD组,n=12),饲喂高脂饲粮,以构建饮食诱导肥胖(diet-induced obesity,DIO)模型。连续饲喂8周后,HFD组小鼠体重较CON组增加20%以上,视为肥胖小鼠模型成功建立[13]。建模完成后,将CON组和HFD组各分为2个亚组:标准饲粮+生理盐水组(CS组,n=6)、标准饲粮+丁酸梭菌组(CB组,n=6)、高脂饲粮+生理盐水组(HS组,n=6)和高脂饲粮+丁酸梭菌组(HB组,n=6)。随后进行4周灌胃处理,CS组和HS组每日灌胃200 μL生理盐水,CB组和HB组每日灌胃200 μL丁酸梭菌菌液,灌胃期间各组小鼠维持原有饲粮模式。分别于灌胃开始时(第0周)、第2周、第4周收集小鼠粪便样品,液氮速冻后置于-80 ℃保存,用于后续微生物组与代谢组检测。样本数量如下:灌胃第0周共24份样品(CON组和HFD组各12份);第2周和第4周各24份样品(CS组、CB组、HS组和HB组各6份)。具体试验设计流程如图1所示。
图1 试验设计流程图

CON:对照组;HFD:高脂组;CS:标准饲粮+生理盐水组;CB:标准饲粮+丁酸梭菌组;HS:高脂饲粮+生理盐水组;HB:高脂饲粮+丁酸梭菌组。下图同。

Fig.1 Flowchart of experimental design

CON: control group; HFD: high-fat group; CS: standard diet+saline group; CB: standard diet+Clostridium butyricum group; HS: high-fat diet+saline group; HB: high-fat diet+Clostridium butyricum group. The same as below.

1.3 粪便菌群分析

精确称取0.1 g粪便样品,采用QIAamp DNA Stool Mini Kit(QIAGEN,德国)提取粪便基因组DNA,并测定DNA浓度与纯度。选用正向引物515F(5'-GTGCCAGCMGCCGCGG-3')和反向引物907R(5'-CCGTCAATTCMTTRAGTTT-3')通过聚合酶链式反应扩增细菌16S rRNA基因V3~V4可变区。通过Illumina高通量测序技术对小鼠粪便菌群进行测序,将测序序列聚类为扩增子序列变体(ASV),并筛选出代表性序列进行物种注释。基于分类学注释结果,在各分类水平解析粪便微生物群落组成。利用QIIME 2软件计算α多样性指数(Shannon、Chao1、Simpson指数),并通过主坐标分析(PCoA)可视化样本β多样性差异。

1.4 粪便代谢组学分析

精确称取0.1 g粪便样品于2 mL离心管中,加入600 μL含4 μg/mL 2-氯-L-苯丙氨酸的甲醇提取液,涡旋振荡30 s;加入钢珠后放入研磨仪,50 Hz研磨120 s,室温超声提取10 min;4 ℃、10 470×g离心10 min,吸取上清液经0.22 μm滤膜过滤,滤液加入检测瓶中,进行液相色谱-质谱联用(LC-MS)检测。原始代谢组数据经标准化缩放后,绘图展示各组代谢物组成差异,并采用置换检验进行模型过拟合检验。结合多指标筛选差异代谢物:通过Student’s t检验获得P值,借助正交偏最小二乘判别分析(OPLS-DA)计算变量投影重要度(VIP),结合倍数变化(FC)评估代谢物对样本分类判别的影响强度和解释能力,辅助标志代谢物的筛选。差异代谢物筛选阈值设定为P<0.05且VIP>1。筛选得到的差异代谢物导入MetaboAnalyst平台,依托MetPA模块基于KEGG数据库开展通路富集分析,获得显著富集通路;进一步利用KEGG Mapper工具实现差异代谢物与富集通路关联可视化。

1.5 数据统计分析

采用SPSS 27.0软件对小鼠体重和粪便菌群α多样性指数进行单因素方差分析(one-way ANOVA),并利用最小显著差异(LSD)法进行组间多重比较;采用GraphPad Prism 10.0软件作图,结果以“平均值±标准误(mean±SE)”的形式呈现,P<0.05表示差异显著。

2 结果与分析

2.1 丁酸梭菌对小鼠体重的影响

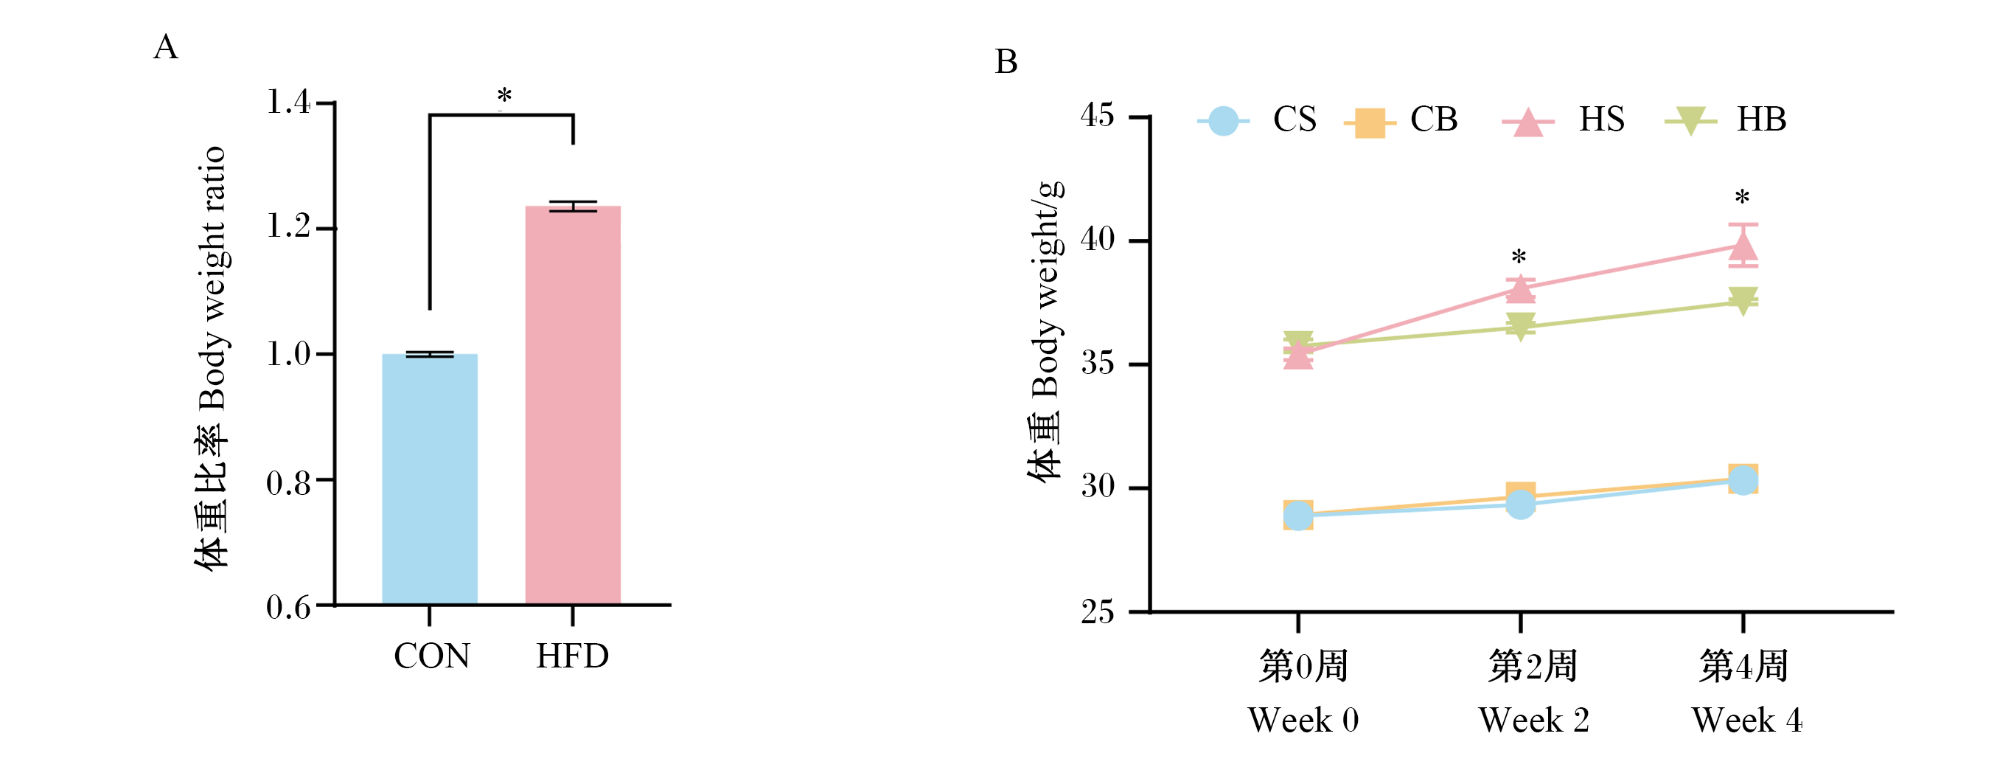
图2-A所示,经过8周的高脂饲粮喂养,HFD组小鼠体重较CON组增加了23.6%,表明肥胖小鼠模型成功建立。如图2-B所示,在高脂饲粮条件下,丁酸梭菌干预第2周和第4周HB组小鼠体重显著低于HS组(P<0.05);在标准饲粮条件下,丁酸梭菌干预第2周和第4周CB组小鼠体重与CS组无显著差异(P>0.05)。
图2 小鼠体重变化

图A中*表示HFD组与CON组之间差异显著(P<0.05);图B中*表示HB组与HS组之间差异显著(P<0.05)。

Fig.2 Changes in body weight of mice

In figure A, * indicated significant difference between HFD group and CON group (P<0.05); in figure B, * indicated significant difference between HB group and HS group (P<0.05).

2.2 小鼠粪便菌群分析

2.2.1 α多样性分析

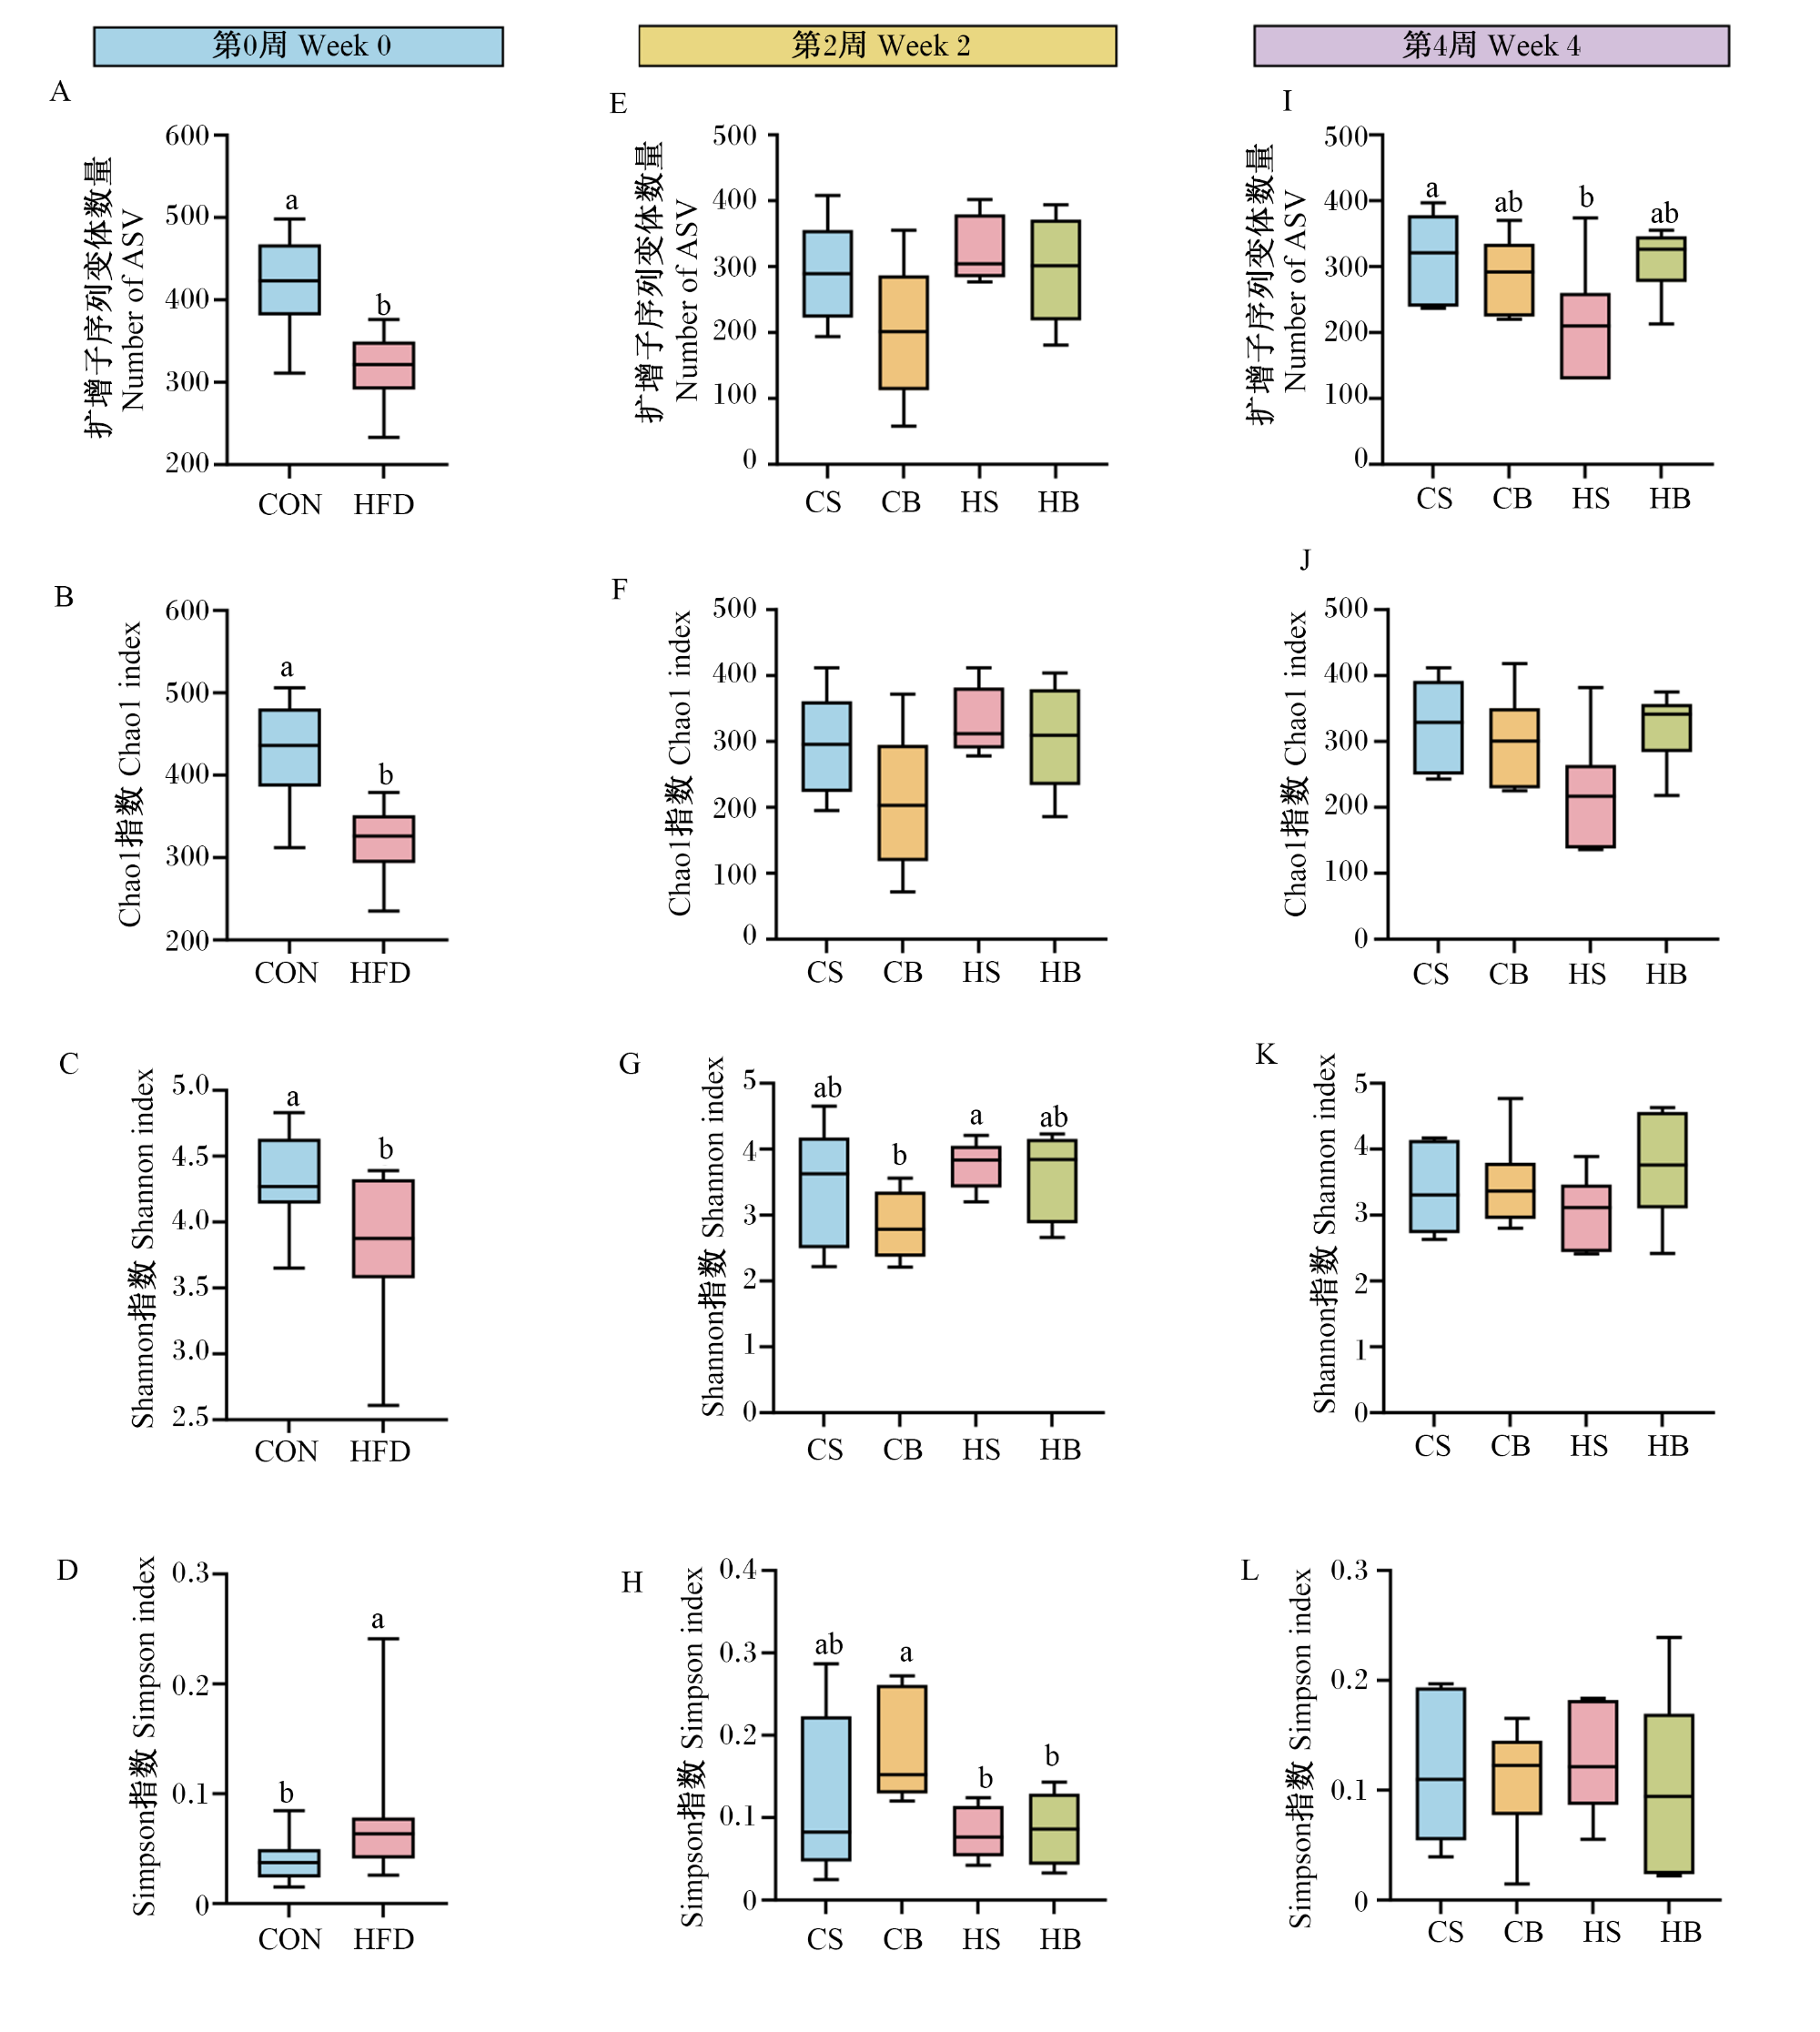
通过ASV数量、Chao1、Shannon和Simpson指数对小鼠粪便菌群丰富度和多样性进行分析。第0周(图3-A~D),与CON组相比,HFD组ASV数量、Chao1和Shannon指数显著降低(P<0.05),Simpson指数显著升高(P<0.05);丁酸梭菌干预第2周(图3-E~H)和第4周(图3-I~L),相同饲粮条件下CS组与CB组及HS组与HB组ASV数量、Chao1、Shannon和Simpson指数均无显著差异(P>0.05),但HB组ASV数量及Chao1、Shannon指数整体高于HS组,菌群丰富度与多样性呈回升趋势。
图3 小鼠粪便菌群α多样性分析

数据柱形标注不同字母表示差异显著(P<0.05),标注相同字母或无字母表示差异不显著(P>0.05)。

Fig.3 Fecal microbiota α diversity analysis of mice

Value columns with different letters mean significant difference (P<0.05), while with the same letter or no letter mean no significant difference (P>0.05).

2.2.2 β多样性分析

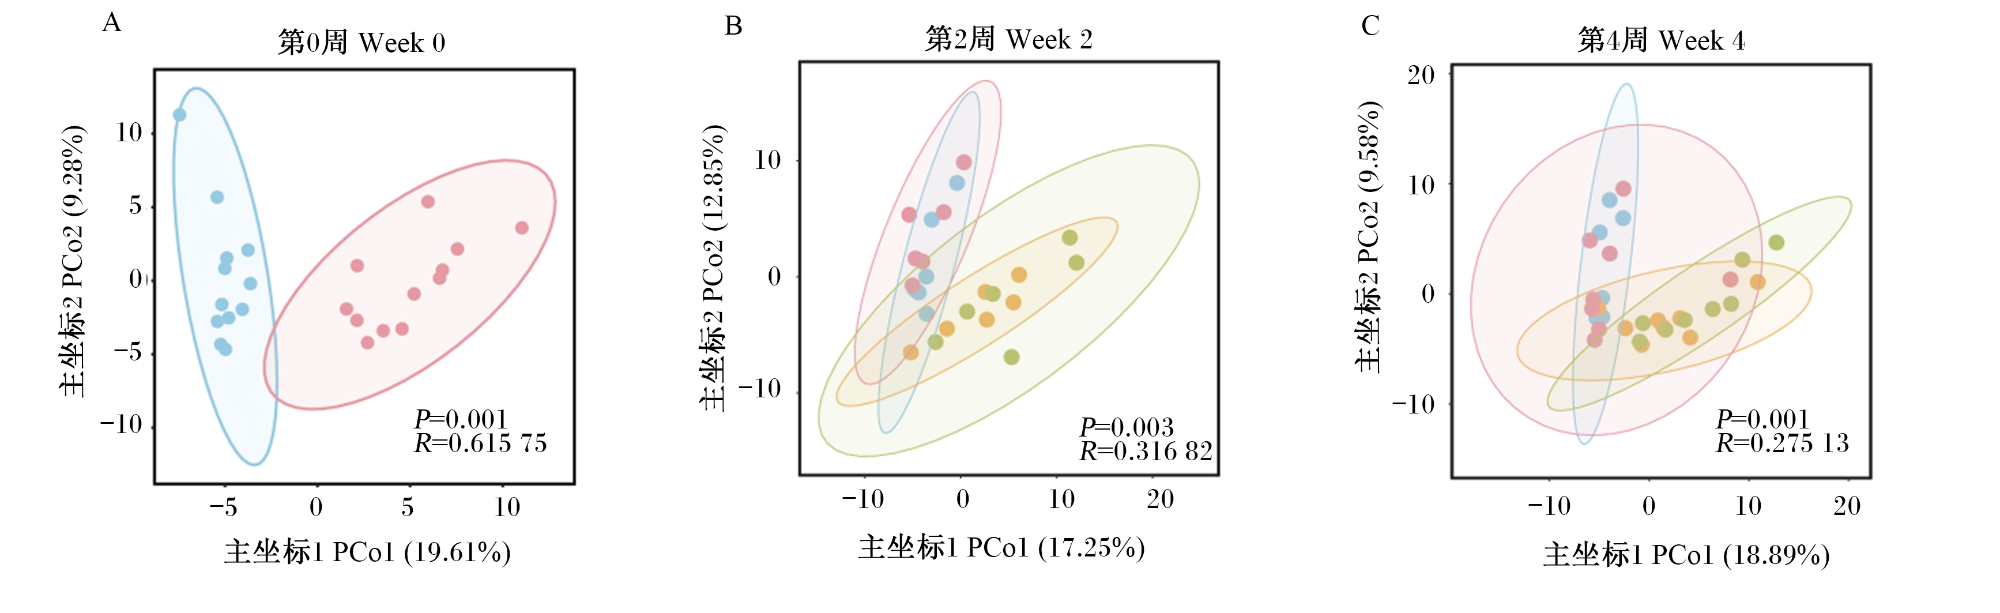
PCoA(图4)结果表明,各组小鼠粪便菌群呈现明显的分组聚类特征。第0周CON组与HFD组粪便菌群明显分离,组间差异显著(R=0.615 75,P=0.001,图4-A);丁酸梭菌干预第2周4组粪便菌群整体结构存在显著差异(R=0.316 82,P=0.003,图4-B),第4周各组菌群结构仍具有显著差异(R=0.275 13,P=0.001,图4-C)。
图4 小鼠粪便菌群β多样性分析

Fig.4 Fecal microbiota β diversity analysis of mice

2.2.3 粪便菌群组成

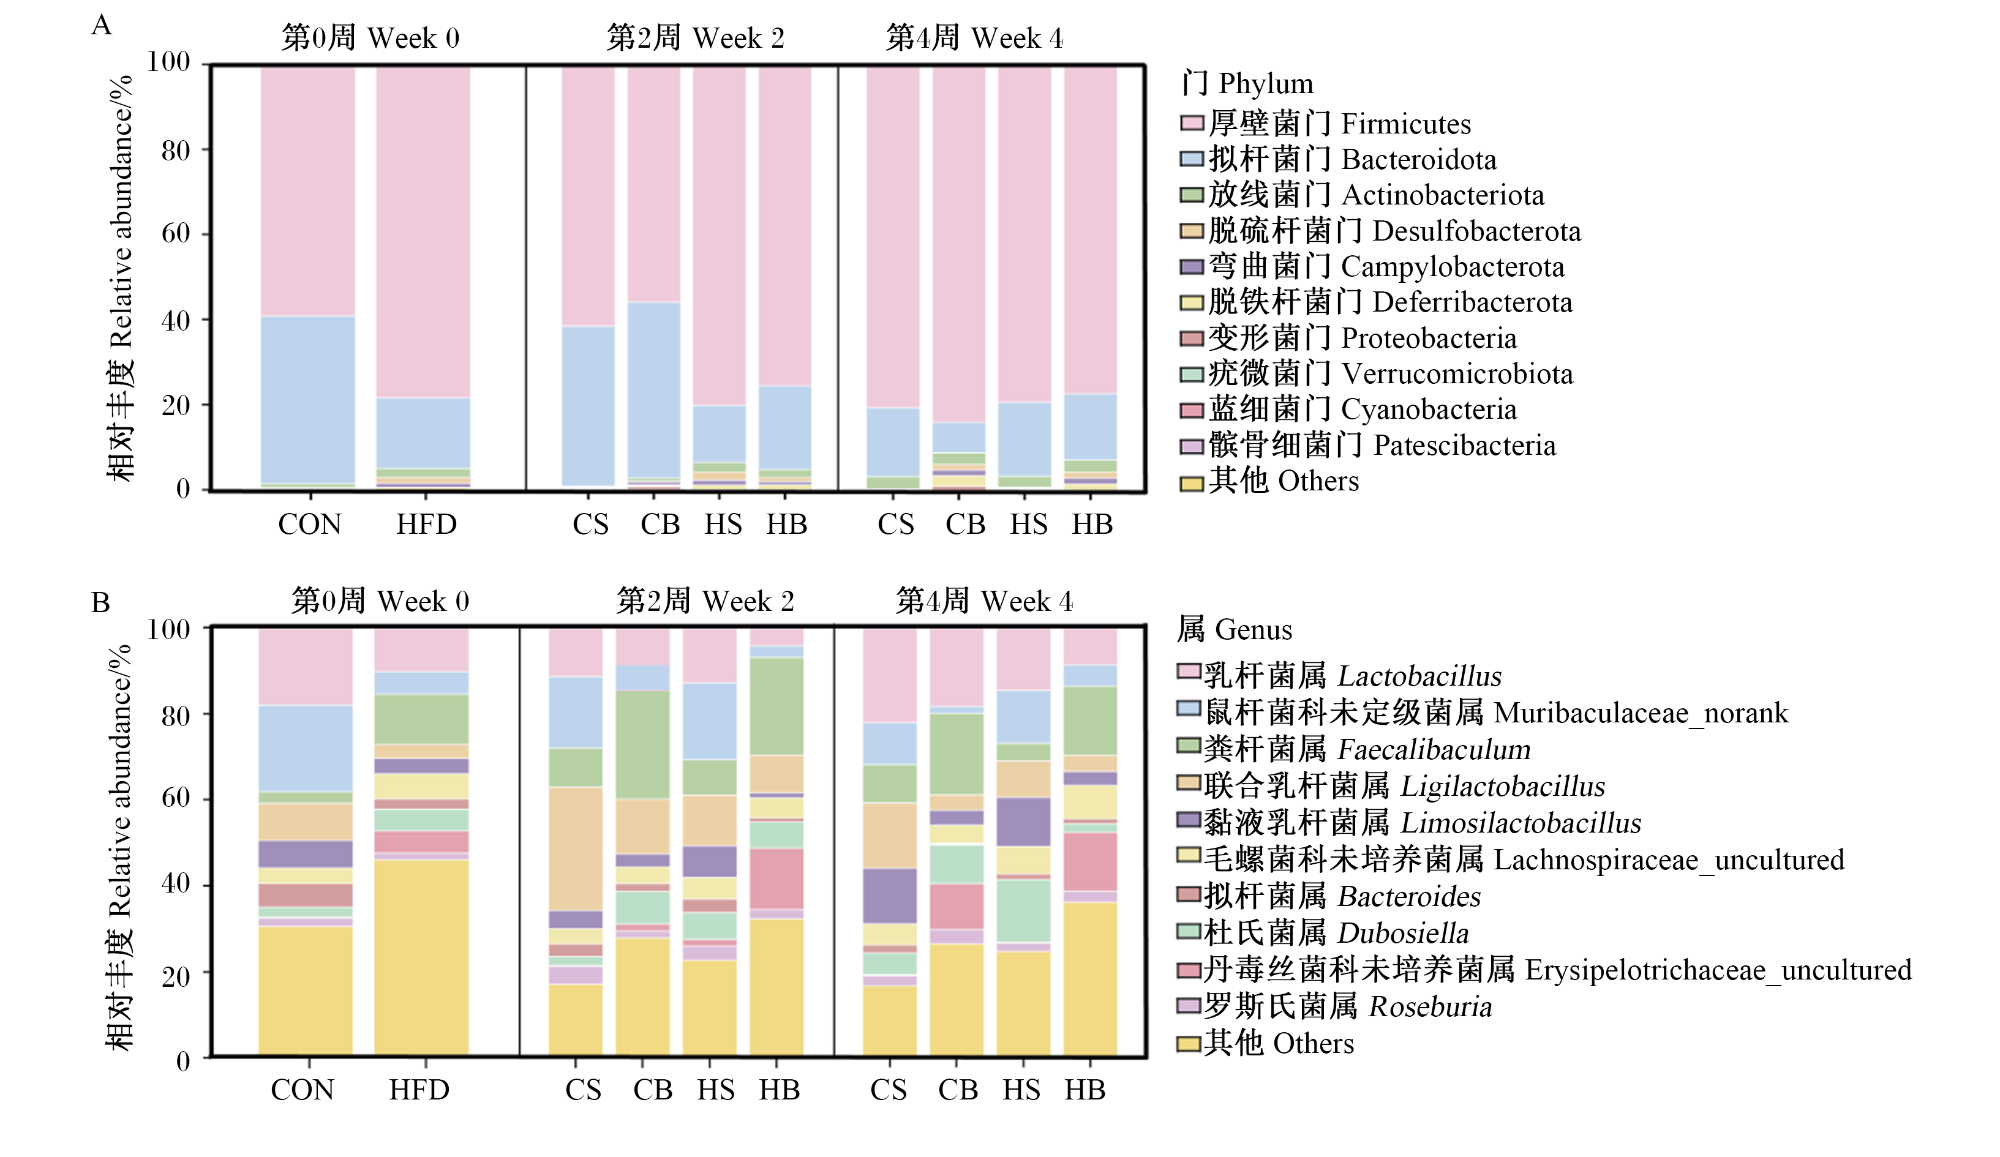
门水平菌群组成分析结果(图5-A)表明,厚壁菌门与拟杆菌门为各组小鼠粪便优势菌门,二者总相对丰度高于90%。与CON组相比,HFD组厚壁菌门/拟杆菌门比值升高。属水平菌群组成分析结果(图5-B)表明,各组小鼠粪便优势菌属包括乳杆菌属、鼠杆菌科未定级菌属(Muribaculaceae_norank)、粪杆菌属(Faecalibaculum)、联合乳杆菌属(Ligilactobacillus)、黏液乳杆菌属(Limosilactobacillus)等。
图5 小鼠粪便菌群门和属水平组成

Fig.5 Fecal microbiota composition at phylum and genus levels of mice

2.2.4 差异菌属富集分析

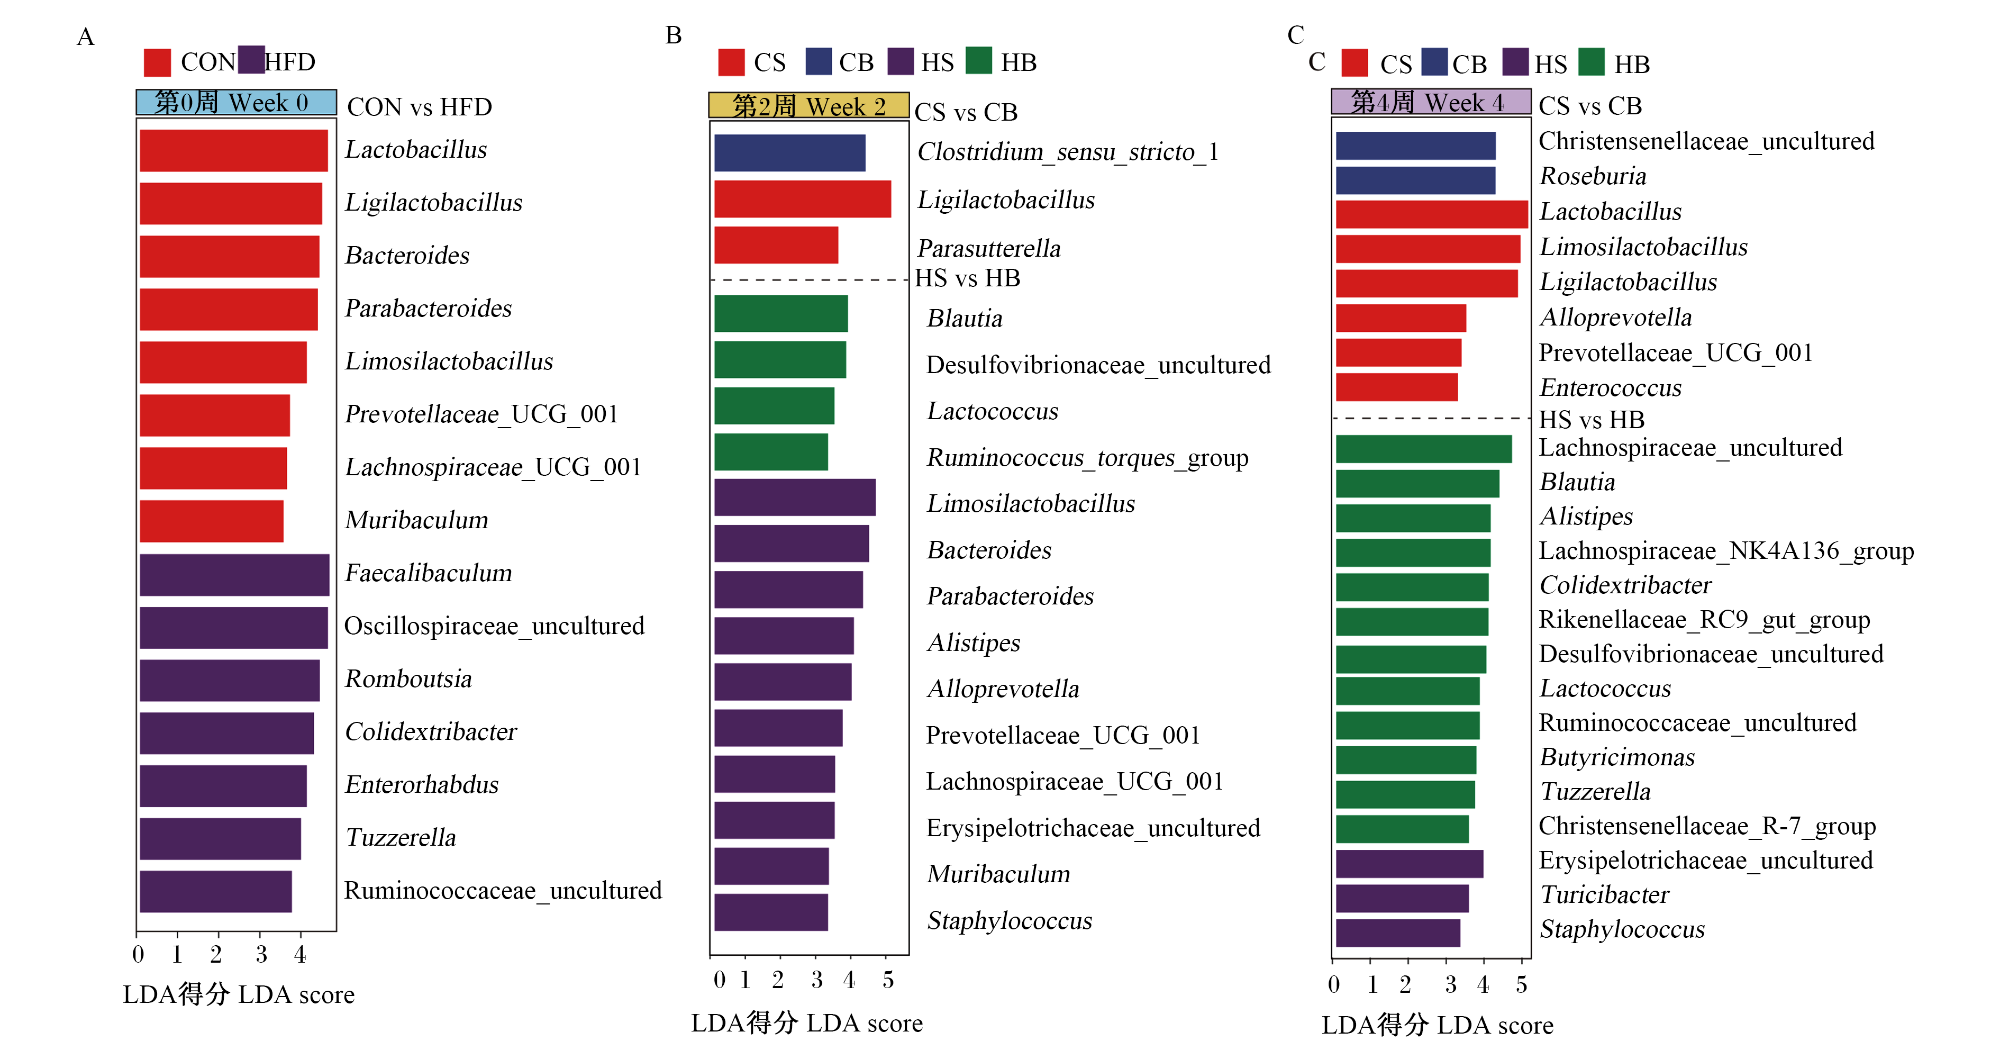
采用线性判别分析(LDA)效应大小分析(LEfSe)筛选各组小鼠粪便标志性菌属,结果显示,第0周(图6-A),CON组富集乳杆菌属、拟杆菌属等菌属,HFD组则富集粪杆菌属、Colidextribacter等菌属。丁酸梭菌干预第2周(图6-B),在标准饲粮条件下,CS组富集联合乳杆菌属和副萨特氏菌属(Parasutterella),CB组富集狭义梭菌属1(Clostridium_sensu_stricto_1);在高脂饲粮条件下,HS组富集葡萄球菌属(Staphylococcus)、另枝菌属(Alistipes)等菌属,HB组富集布劳特氏菌属(Blautia)、乳球菌属(Lactococcus)等菌属。丁酸梭菌干预第4周(图6-C),在标准饲粮条件下,与CS组相比,CB组富集罗斯氏菌属(Roseburia)和克里斯滕森氏菌科未培养菌属(Christensenellaceae_uncultured);在高脂饲粮条件下,HS组富集丹毒丝菌科未培养菌属、葡萄球菌属等菌属,HB组富集布劳特氏菌属和乳球菌属等菌属。
图6 小鼠粪便差异菌属分析

Lactobacillus:乳杆菌属;Ligilactobacillus:联合乳杆菌属;Bacteroides:拟杆菌属;Parabacteroides:副拟杆菌属;Limosilactobacillus:黏液乳杆菌属;Prevotellaceae_UCG-001:普雷沃氏菌科UCG-001;Lachnospiraceae_UCG-001:毛螺菌科UCG-001;Muribaculum:鼠杆菌属;Faecalibaculum:粪杆菌属;Oscillospiraceae_uncultured:颤螺菌科未培养菌属;Romboutsia:罗姆布茨菌属;Enterorhabdus:肠杆状菌属;Tuzzerella:图泽氏菌属;Ruminococcaceae_uncultured:瘤胃球菌科未培养菌属;Clostridium_sensu_stricto_1:狭义梭菌属1;Parasutterella:副萨特氏菌属;Lactococcus:乳球菌属;Ruminococcus_torques_group:瘤胃球菌属扭链群;Alistipes:另枝菌属;Erysipelotrichaceae_uncultured:丹毒丝菌科未培养菌属;Staphylococcus:葡萄球菌属;Christensenellaceae_uncultured:克里斯滕森氏菌科未培养菌属;Roseburia:罗斯氏菌属;Enterococcus:肠球菌属;Blautia:布劳特氏菌属;Lachnospiraceae_uncultured:毛螺菌科未培养菌属;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Desulfovibrionaceae_uncultured:脱硫弧菌科未培养菌属;Butyricimonas:丁酸单胞菌属;Christensenellaceae_R-7_group:克里斯滕森氏菌科R-7群;Turicibacter:苏黎世杆菌属。图10同 the same as Fig.10

Fig.6 Fecal differential bacterial genera analysis of mice

2.3 小鼠粪便代谢组学分析

2.3.1 粪便代谢组OPLS-DA得分图和置换检验结果
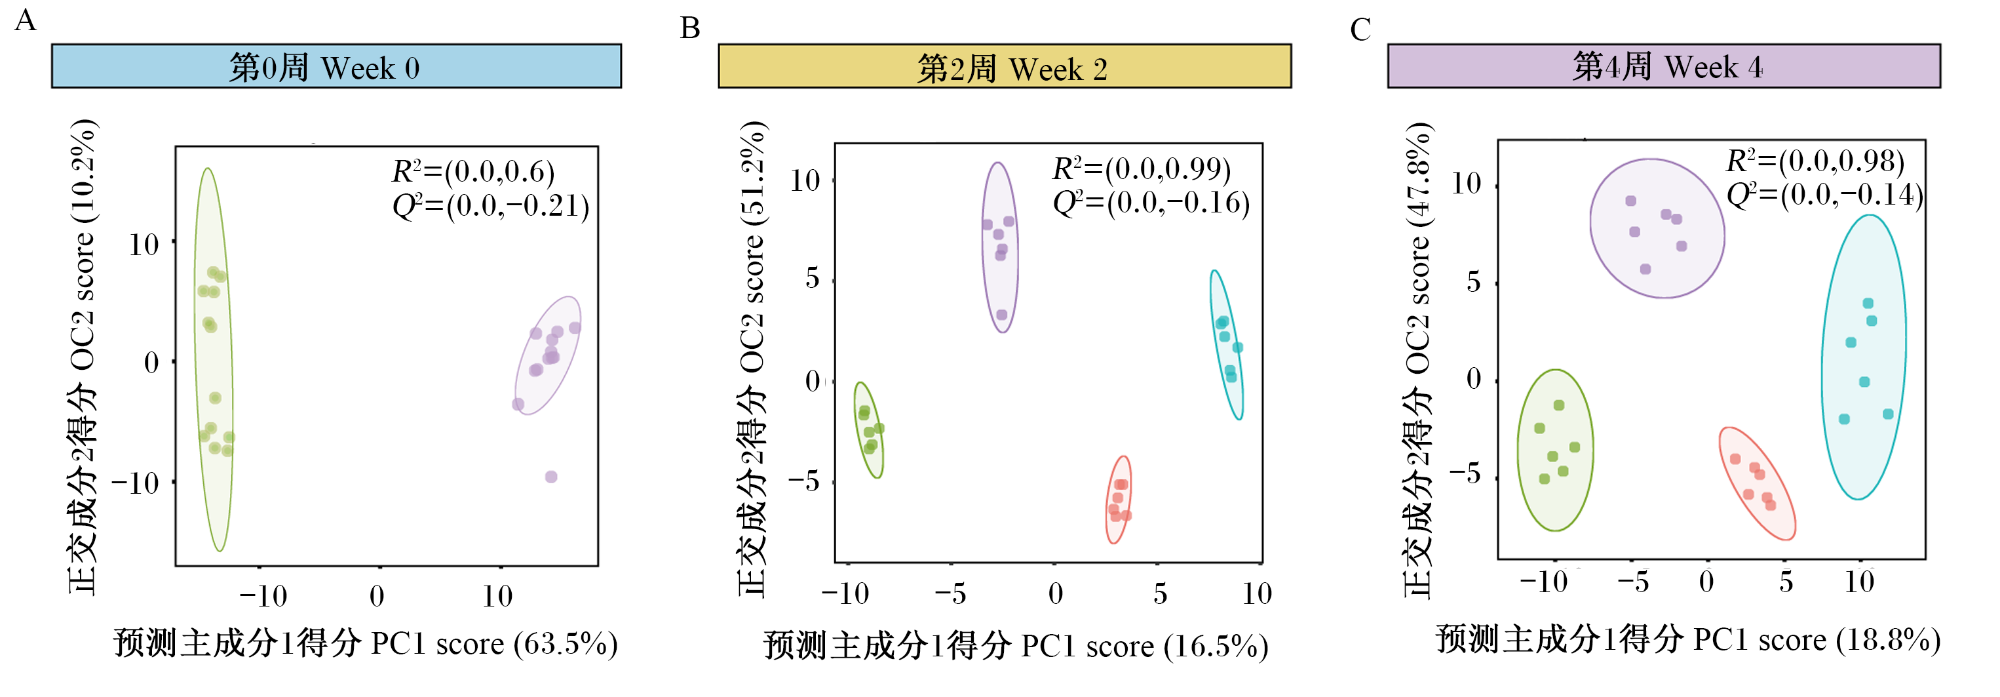
采用OPLS-DA模型解析不同时间点各组小鼠粪便代谢物整体差异,结果如图7所示,第0周CON组与HFD组样本完全分离、无重叠,丁酸梭菌干预第2周和第4周CS组、CB组、HS组和HB组之间存在明显的分离趋势。置换检验模型拟合度(R2)和模型预测能力(Q2)结果显示OPLS-DA模型无过拟合现象,拟合效果稳定可靠,可用于后续差异代谢物筛选。
图7 OPLS-DA得分图和置换检验结果

R2:模型拟合度 goodness of fit of the model;Q2:模型预测能力 predictive ability of the model。

Fig.7 OPLS-DA score plot and permutation test result

2.3.2 差异代谢物筛选

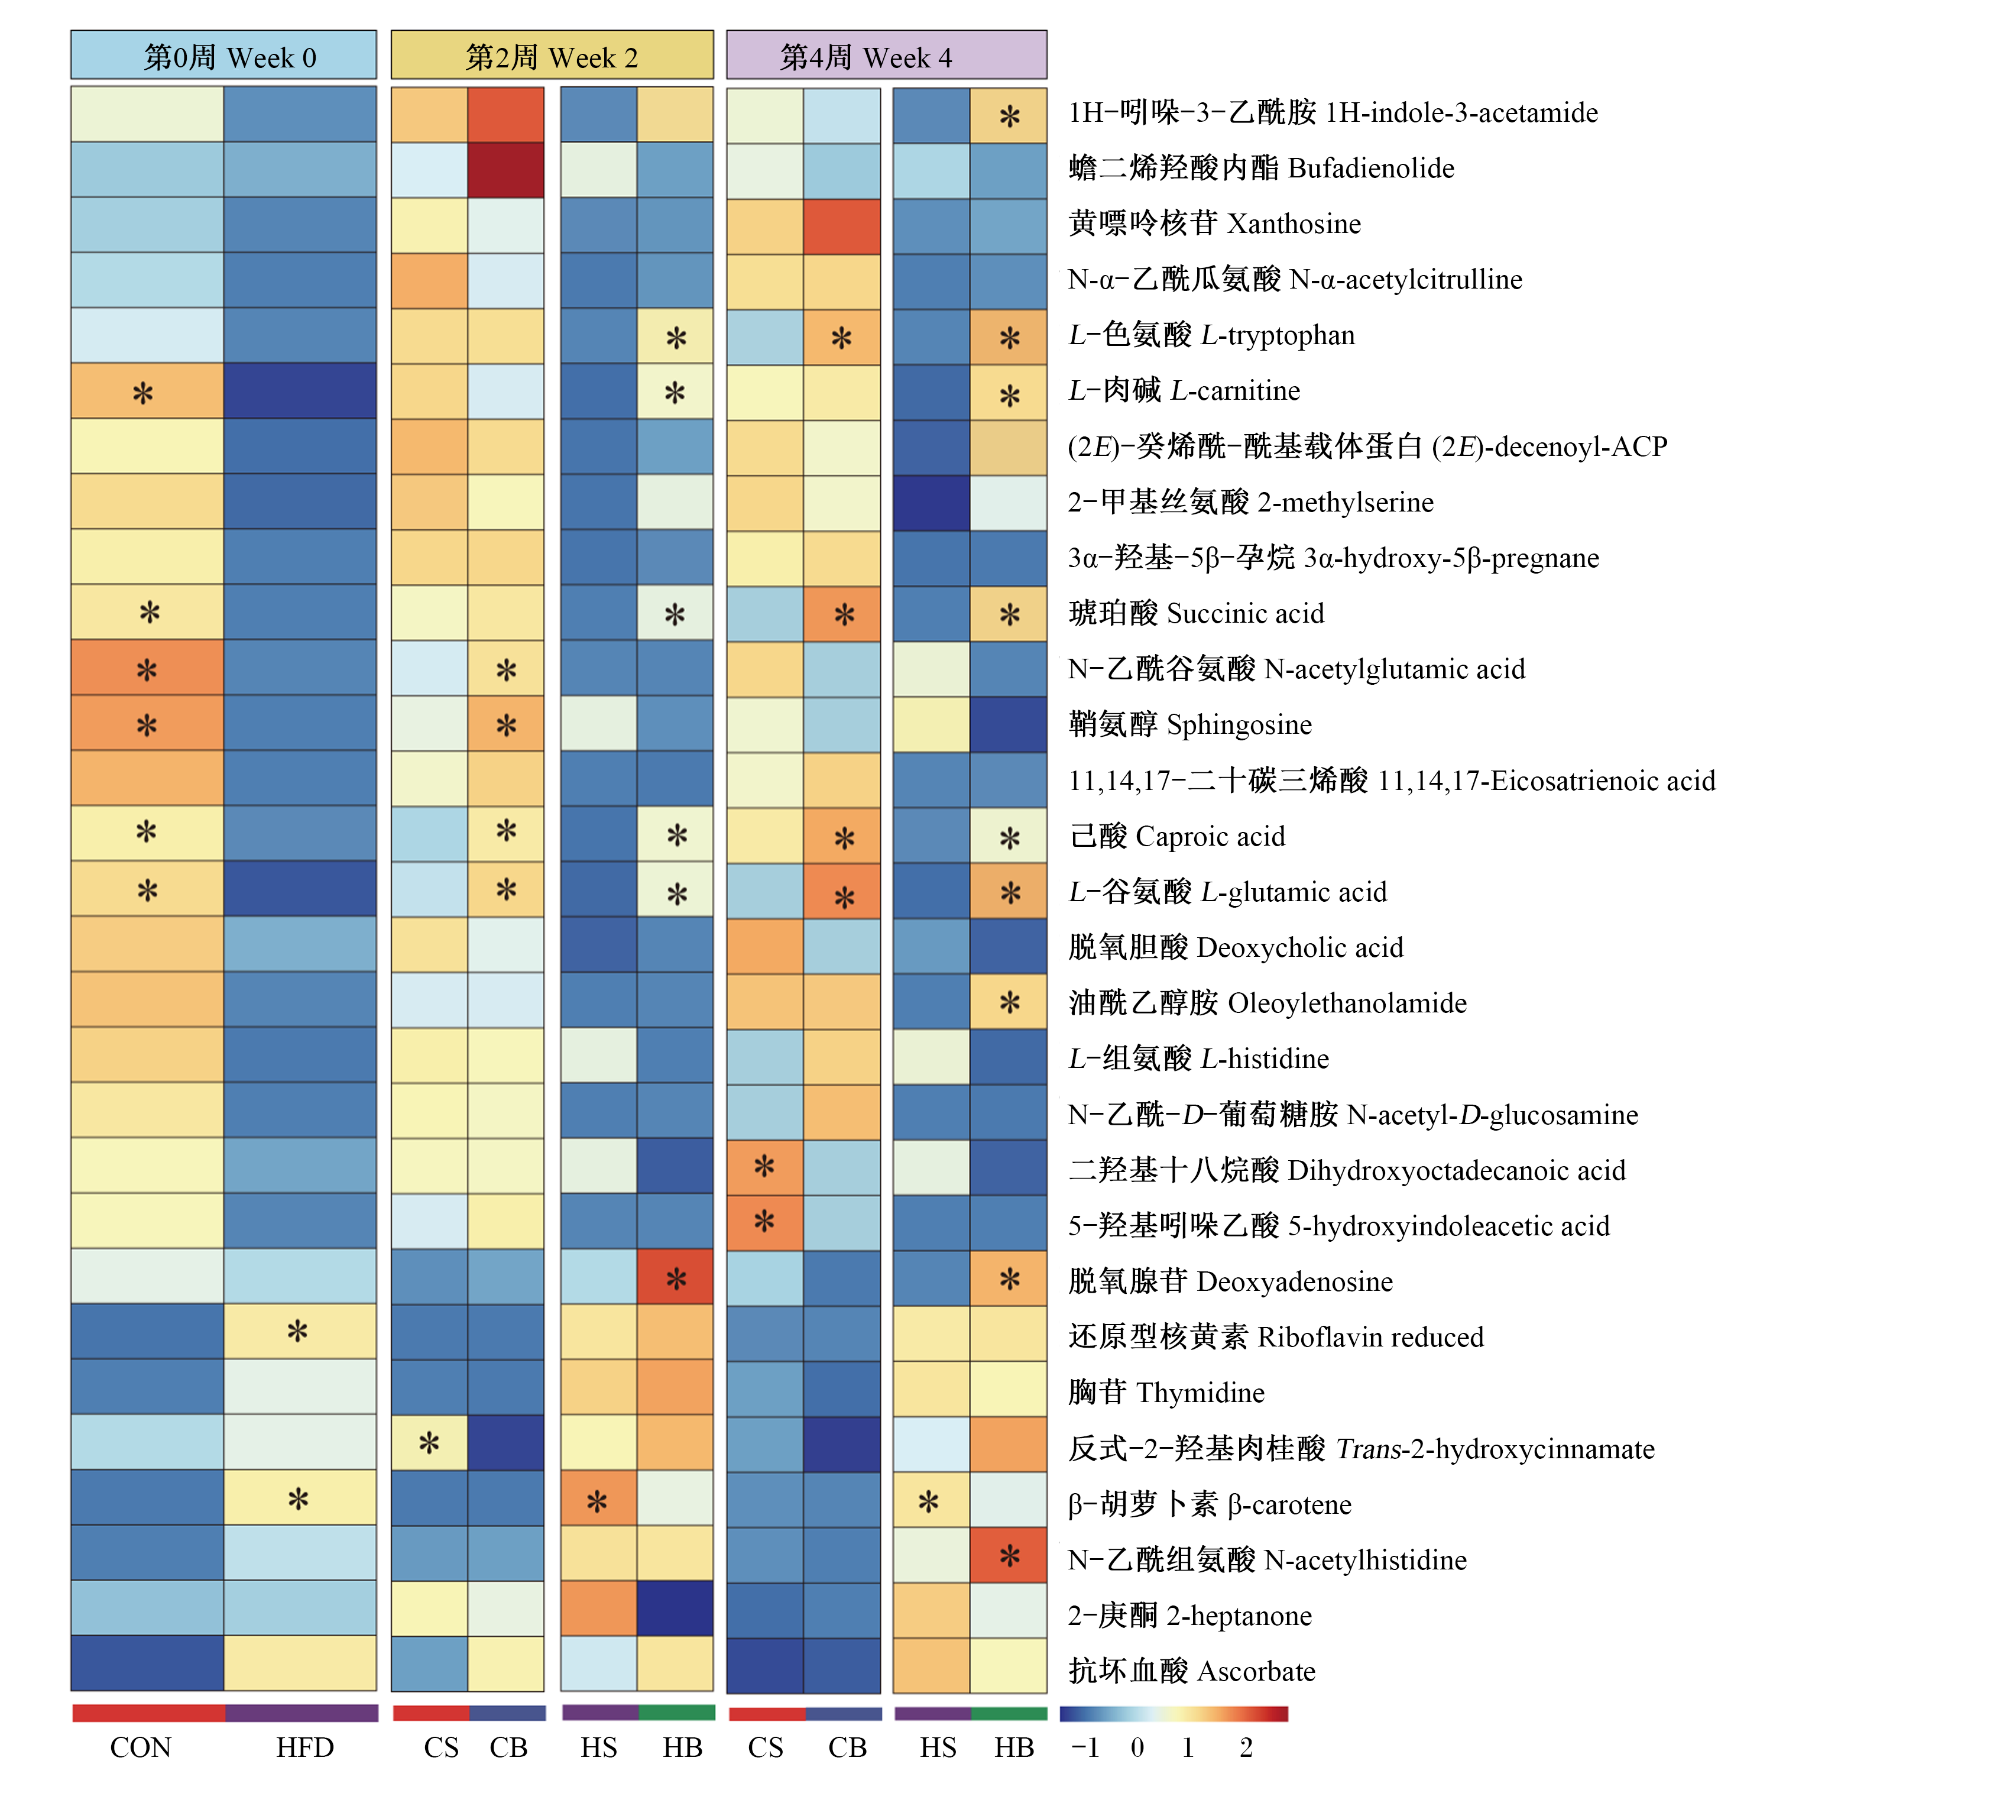
进一步以VIP>1和P<0.05为阈值,筛选CON组vs HFD组、CS组vs CB组、HS组vs HB组小鼠粪便中的差异代谢物,结果(图8)表明,第0周,与CON组相比,HFD组L-肉碱、琥珀酸等代谢物相对含量显著降低(P<0.05),β-胡萝卜素和还原型核黄素相对含量显著升高(P<0.05)。丁酸梭菌干预第2周,在标准饲粮条件下,与CS组相比,CB组己酸、L-谷氨酸等代谢物相对含量显著升高(P<0.05);在高脂饲粮条件下,与HS组相比,HB组β-胡萝卜素相对含量显著降低(P<0.05),己酸、L-色氨酸、琥珀酸、L-谷氨酸等代谢物相对含量显著升高(P<0.05)。丁酸梭菌干预第4周代谢调控规律与第2周类似,在标准饲粮条件下,与CS组相比,CB组己酸、L-谷氨酸和琥珀酸等代谢物相对含量显著升高(P<0.05);在高脂饲粮条件下,与HS组相比,HB组L-肉碱、L-色氨酸、琥珀酸、1H-吲哚-3-乙酰胺、L-谷氨酸和油酰乙醇胺等代谢物相对含量显著升高(P<0.05)。
图8 粪便差异代谢物分析

*表示差异显著(P<0.05)。

Fig.8 Analysis of fecal differential metabolites

* indicates significant difference (P<0.05).

2.3.3 差异代谢物KEGG通路富集分析

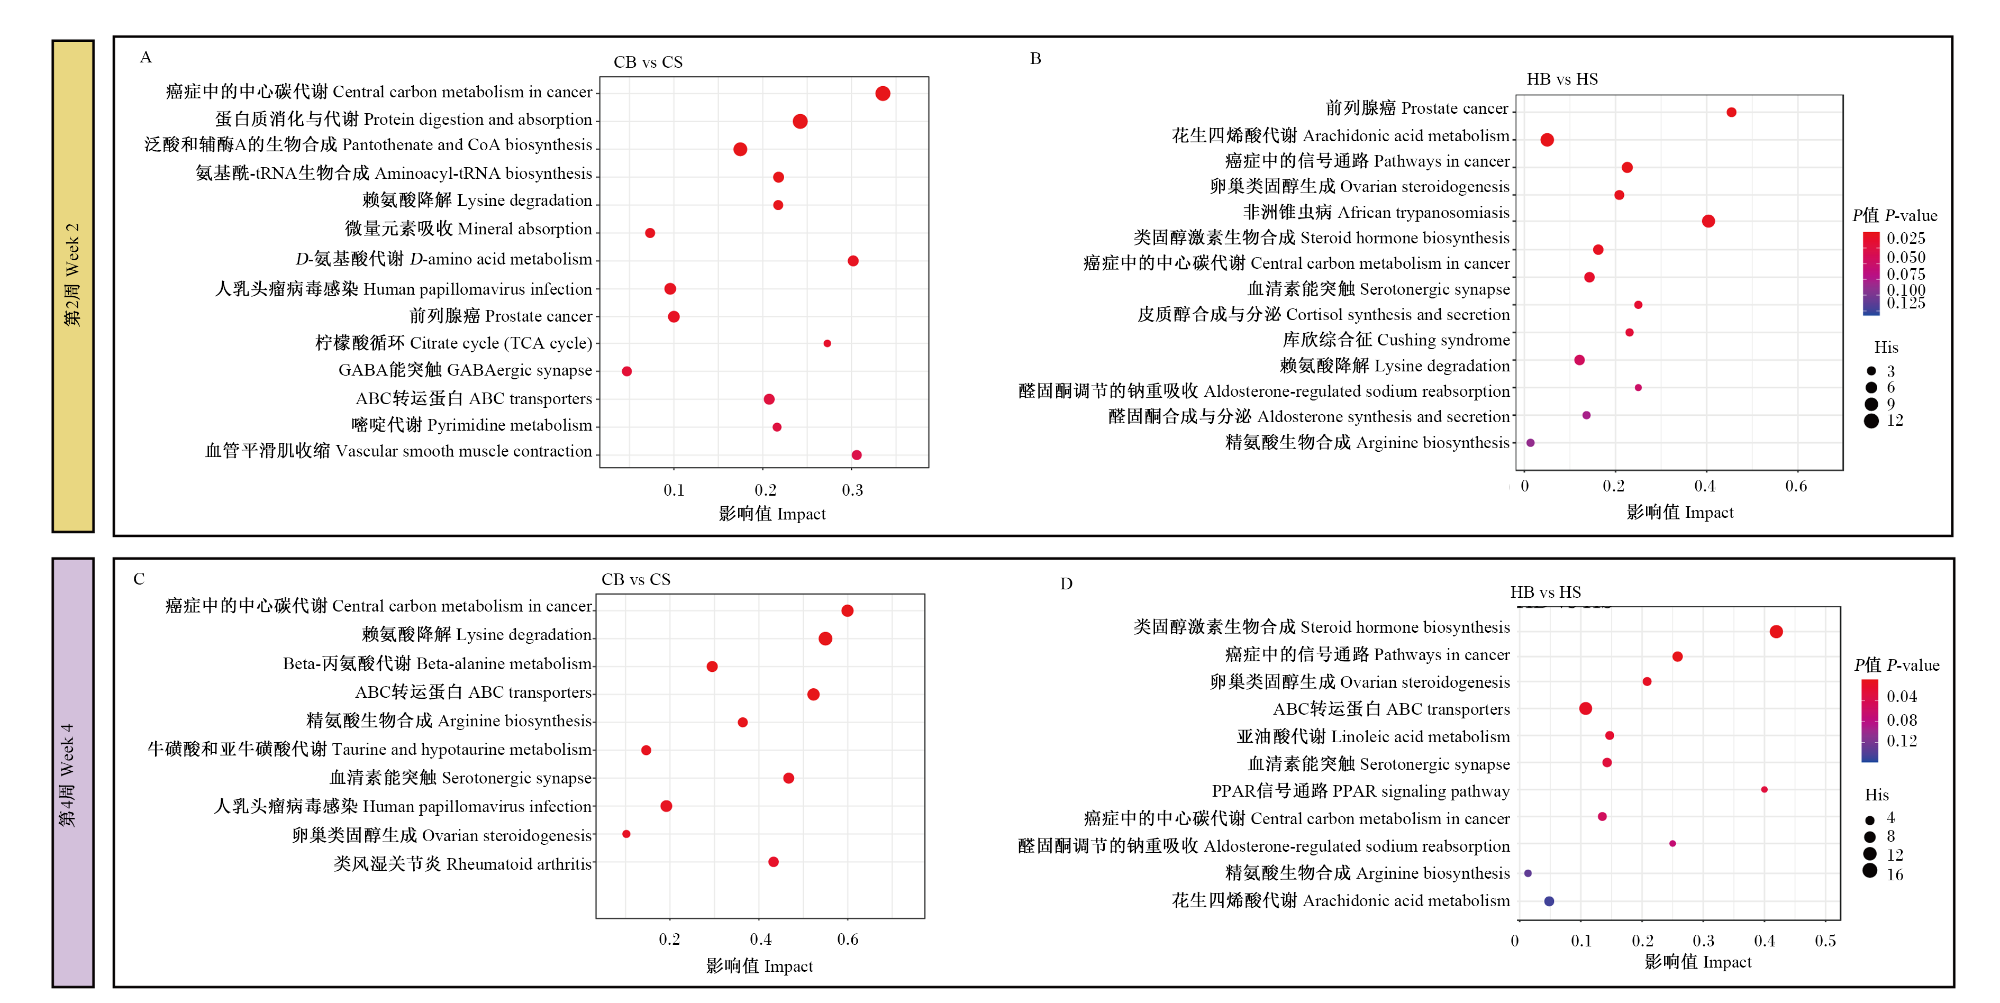
为了进一步解析差异代谢物的作用机制,将不同饲粮条件下筛选得到的差异代谢物进行KEGG富集通路分析,结果(图9)显示,标准饲粮条件下,丁酸梭菌干预后第2周和第4周,差异代谢物富集于赖氨酸降解、精氨酸生物合成等通路;高脂饲粮条件下,丁酸梭菌干预第2周,差异代谢物富集于花生四烯酸代谢、类固醇激素生物合成和赖氨酸降解等通路;丁酸梭菌干预第4周,差异代谢物富集于类固醇激素生物合成、亚油酸代谢、精氨酸生物合成和花生四烯酸代谢等信号通路。
图9 代谢通路影响因子气泡图

Fig.9 Bubble diagrams of metabolic pathway impact factors

2.4 差异菌属与差异代谢物的相关性分析

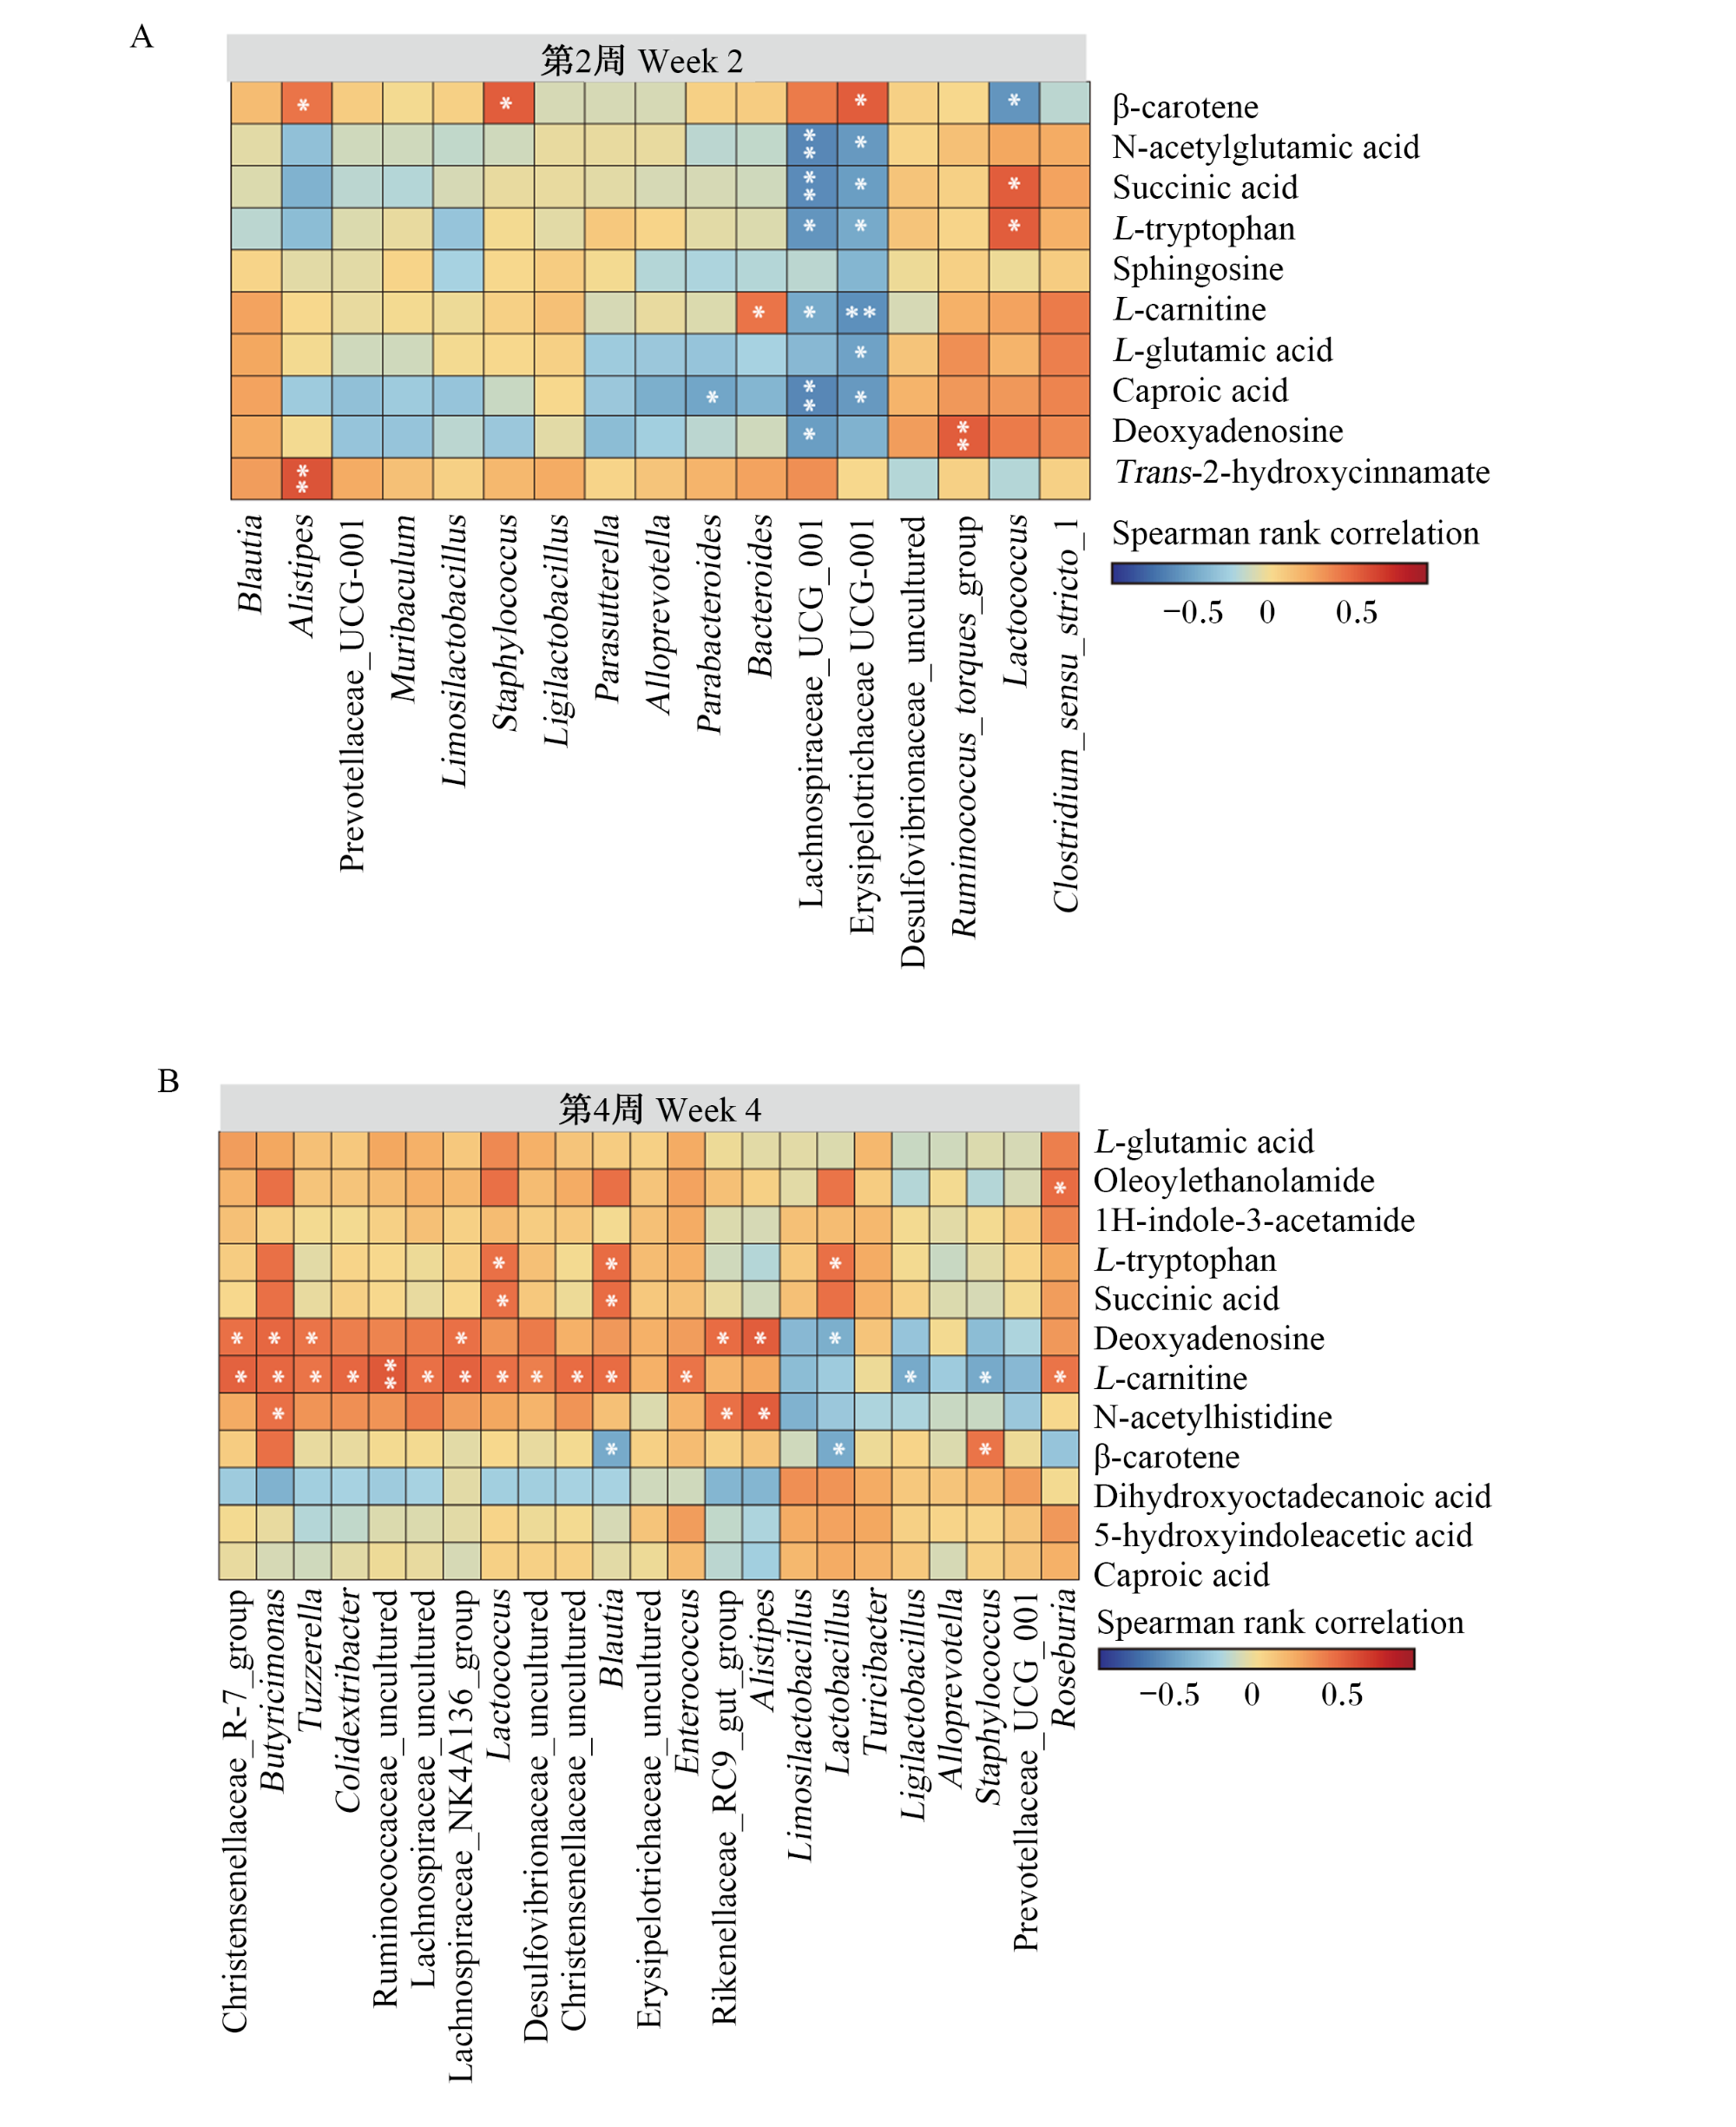
采用Spearman相关性分析探究丁酸梭菌干预肥胖小鼠粪便差异菌属与差异代谢物的相关性,以|相关系数|(|r|)>0.6且P<0.05作为显著相关标准,结果(图10)显示,丁酸梭菌干预第2周,乳球菌属相对丰度与β-胡萝卜素相对含量呈显著负相关(P<0.05),与琥珀酸、L-色氨酸相对含量呈显著正相关(P<0.05);葡萄球菌属相对丰度与β-胡萝卜素相对含量呈显著正相关(P<0.05)。丁酸梭菌干预第4周,布劳特氏菌属相对丰度与L-肉碱、L-色氨酸、琥珀酸相对含量呈显著正相关(P<0.05),与β-胡萝卜素相对含量呈显著负相关(P<0.05);葡萄球菌属相对丰度与β-胡萝卜素相对含量呈显著正相关(P<0.05)。
图10 粪便差异菌属与差异代谢物的相关性分析

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

β-carotene:β-胡萝卜素;N-acetylglutamic acid:N-乙酰谷氨酸;Succinic acid:琥珀酸;L-tryptophan:L-色氨酸;Sphingosine:鞘氨醇;L-carnitine:L-肉碱;L-glutamic acid:L-谷氨酸;Caproic acid:己酸;Deoxyadenosine:脱氧腺苷;Trans-2-hydroxycinnamate:反式-2-羟基肉桂酸;Oleoylethanolamide:油酰乙醇胺;1H-indole-3-acetamide:1H-吲哚-3-乙酰胺;N-acetylhistidine:N-乙酰组氨酸;Dihydroxyoctadecanoic acid:二羟基十八烷酸;5-hydroxyindoleacetic acid:5-羟基吲哚乙酸;Spearman rank correlation:Spearman等级相关。

Fig.10 Correlation analysis between fecal differential bacterial genera and differential metabolites

* indicates significant difference (P<0.05), ** indicates extremely significant difference (P<0.01).

3 讨论

肥胖是影响畜禽肉质品质和健康养殖的重要问题,其会导致饲料转化率降低,引起机体肠道紊乱、代谢异常等疾病,而益生菌可以重塑宿主的代谢谱,为畜禽肥胖的绿色防控提供了新思路与技术支撑[8-9,13]。本试验以高脂饲粮诱导的肥胖小鼠为研究对象,结果显示,高脂饲粮条件下丁酸梭菌干预可显著缓解小鼠体重增长,促进肠道有益菌定殖并富集有益代谢物,该结果与王威皓等[10]的研究结论相符。现有畜禽相关研究已证实,丁酸梭菌在维持肠道健康稳态、调控机体代谢平衡方面发挥关键作用[14-15],其可通过优化肠道菌群组成、改善代谢紊乱,提升畜禽生产性能,实现生产效益最大化。
肠道微生态平衡与机体健康密切相关。已有研究证实,肥胖可诱发肠道菌群紊乱并改变机体整体代谢水平[9,16]
本研究结果显示,经过4周丁酸梭菌干预,摄食高脂饲粮小鼠粪便微生物ASV数量及Chao1、Shannon指数升高,提示丁酸梭菌有利于改善肥胖小鼠粪便菌群丰富度与多样性;β多样性分析结果进一步证实,丁酸梭菌干预可调节小鼠粪便菌群结构。本研究观察到HFD组肥胖小鼠粪便厚壁菌门/拟杆菌门比值较CON组提高,该比值升高是肥胖相关菌群的典型特征[17];同时发现了肥胖相关标志菌Colidextribacter在HFD组显著富集,该菌属过度增殖会破坏肠道屏障,进一步加重代谢紊乱[18]。本试验中丁酸梭菌对Colidextribacter相对丰度未表现出稳定的下调作用,推测丁酸梭菌并非直接靶向该肥胖标志菌,而是通过富集其他有益菌群、改善肠道代谢稳态,进而缓解小鼠肥胖。菌群组成分析结果表明,在标准饲粮条件下,丁酸梭菌主要促进克里斯滕森氏菌科未培养菌属、罗斯氏菌属等潜在有益菌富集;在高脂饲粮条件下,则主要促进布劳特氏菌属、乳球菌属有益菌富集。已有研究证实,克里斯滕森氏菌科和罗斯氏菌属具有缓解肠道炎症、维持肠道稳态及调节脂质代谢的作用[19-20],而乳球菌属不仅能够为肠上皮细胞提供能量、增强肠道屏障完整性,还参与宿主脂肪代谢及能量平衡调控[21-22]。此外,布劳特氏菌属作为肠道内重要的短链脂肪酸生产者,其益生作用与活跃的氨基酸代谢相关,可生成琥珀酸、乳酸和乙酸等代谢物[23]。其中,琥珀酸作为肠道菌群与宿主共代谢的重要中间产物,可缓解肠道炎症、恢复菌群及代谢稳态,并发挥抗肥胖、减少脂肪沉积的作用[24-25]
本研究中粪便代谢组分析结果进一步证实了上述菌群结构变化所引起的功能差异。在标准饲粮条件下,丁酸梭菌干预显著提高了己酸、L-谷氨酸和琥珀酸等代谢物相对含量。其中,己酸和琥珀酸有助于维持肠道屏障稳态,而L-谷氨酸则参与宿主基础能量代谢及氨基酸代谢,协同维持机体代谢稳态[26]。在高脂饲粮条件下,除上述代谢物外,丁酸梭菌干预还显著提高了L-色氨酸、L-肉碱和1H-吲哚-3-乙酰胺等功能性代谢物相对含量,提示其在高脂饲粮诱导的代谢紊乱状态下可通过调控脂质代谢发挥益生作用。已有研究为上述代谢物变化提供了机制依据:布劳特氏菌属菌群可通过促进L-色氨酸代谢,诱导吲哚-3-乙酸生成,从而改善糖和脂代谢紊乱[27];L-色氨酸还能抑制肥胖机体能量摄入,参与宿主能量代谢调控[28]。Ye等[29]研究发现,布劳特氏菌属相对丰度与硬脂酰肉碱含量呈显著正相关,而硬脂酰肉碱的生成依赖于酰基辅酶A合成酶及肉碱参与脂肪酸转运,提示布劳特氏菌属可能通过促进肉碱代谢增强脂肪酸β氧化。L-肉碱作为脂肪酸线粒体转运的重要载体,在调控脂质代谢、减轻炎症及改善肥胖方面具有重要作用[30-31]。值得注意的是,本研究发现饲喂高脂饲粮时小鼠粪便中β-胡萝卜素相对含量显著上升,已有报道指出β-胡萝卜素异常积累可促进脂质沉积,加剧代谢紊乱并诱导氧化应激[32];而丁酸梭菌干预可显著降低肥胖小鼠粪便β-胡萝卜素相对含量,缓解脂质异常蓄积。丁酸梭菌干预4周后,与HS组相比,HB组油酰乙醇胺相对含量显著提高。油酰乙醇胺可促进亚油酸向抗炎脂质转化,并通过调控脂质代谢及抑制食欲发挥抗肥胖效应[33],这进一步证实丁酸梭菌能够改善高脂饲粮诱发的代谢紊乱。为阐明菌群与代谢物之间的关联,本研究进行了Spearman相关性分析,结果显示布劳特氏菌属和乳球菌属相对丰度与L-色氨酸、琥珀酸等多种降脂、抗炎代谢物相对含量呈显著正相关,提示二者可能是驱动功能性代谢物生成、介导丁酸梭菌改善宿主代谢的关键菌属。此外,KEGG通路富集结果表明,标准饲粮条件下丁酸梭菌干预主要富集氨基酸合成、降解相关通路,侧重维持肠道基础代谢平衡[26];高脂饲粮条件下丁酸梭菌干预则富集了亚油酸代谢、花生四烯酸代谢等代谢通路,其均被报道是抗炎脂质生成的重要通路[34-35]。这与既往报道中益生菌通过调节微生物组成及代谢通路以维持代谢稳态的研究结论[36]类似。综合来看,丁酸梭菌在不同饲粮条件下形成差异化调控模式:高脂饲粮条件下,丁酸梭菌侧重于促进脂肪酸氧化、缓解慢性炎症、修复脂质代谢紊乱,最终降低小鼠体重;标准饲粮条件下丁酸梭菌主要维持肠道菌群与代谢稳态,不足以引起宿主体重改变,体现出丁酸梭菌适应宿主代谢状态的靶向调控特征。
本研究证实,丁酸梭菌能够改善高脂饲粮诱导肥胖小鼠粪便菌群结构、提升菌群多样性,优化菌群代谢平衡,进而缓解小鼠肥胖。但本研究仍存在一定局限,丁酸梭菌调节肠道菌群的核心分子靶点、介导代谢稳态重塑的关键信号通路,以及这些调控作用如何通过长期协同效应,仍有待通过更深入的分子生物学实验与多组学联合分析加以阐明。

4 结论

① 丁酸梭菌干预可显著降低肥胖小鼠体重,促进粪便中布劳特氏菌属、乳球菌属等有益菌富集,同时可显著上调L-色氨酸、1H-吲哚-3-乙酰胺、琥珀酸、L-肉碱等降脂、抗炎功能性代谢物的相对含量,并可能通过调控精氨酸生物合成、亚油酸代谢及花生四烯酸代谢等通路改善脂质代谢。
② 在标准饲粮条件下,丁酸梭菌干预可促进小鼠粪便中克里斯滕森氏菌科未培养菌属、罗斯氏菌属等潜在有益菌富集,诱发的差异代谢物变化特征与高脂饲粮条件下相近,但对小鼠体重无显著影响。
[1]
CHENG C S, WU X Y, ZHANG X F, et al. Obesity of sows at late pregnancy aggravates metabolic disorder of perinatal sows and affects performance and intestinal health of piglets[J]. Animals, 2019, 10(1):49.

DOI

[2]
LAMABADUSURIYA D A, JAYASENA H, BOPITIYA A K, et al. Obesity-driven inflammation and cancer risk:a comprehensive review[J]. Seminars in Cancer Biology, 2025, 114:256-266.

DOI

[3]
LI J J, PANG B, SHAO D Y, et al. Artemisia sphaerocephala Krasch polysaccharide mediates lipid metabolism and metabolic endotoxaemia in associated with the modulation of gut microbiota in diet-induced obese mice[J]. International Journal of Biological Macromolecules, 2020, 147:1008-1017.

DOI

[4]
LI J C, ZHANG J, ZHANG Y L, et al. Effect and correlation of Rosa roxburghii Tratt fruit vinegar on obesity,dyslipidemia and intestinal microbiota disorder in high-fat diet mice[J]. Foods, 2022, 11(24):4108.

DOI

[5]
PELC A, FIC W, TYPROWICZ T, et al. Physiological mechanisms of and therapeutic approaches to the gut microbiome and low-grade inflammation in obesity[J]. Current Issues in Molecular Biology, 2025, 47(8):637.

DOI

[6]
WANG H, ZHANG H Y, GAO Z Z, et al. The mechanism of berberine alleviating metabolic disorder based on gut microbiome[J]. Frontiers in Cellular and Infection Microbiology, 2022, 12:854885.

DOI

[7]
LIÉBANA-GARCÍA R, LÓPEZ-ALMELA I, OLIVARES M, et al. Gut commensal Phascolarctobacterium faecium retunes innate immunity to mitigate obesity and metabolic disease in mice[J]. Nature Microbiology, 2025, 10(6):1310-1322.

DOI

[8]
ABENAVOLI L, SCARPELLINI E, COLICA C, et al. Gut microbiota and obesity:a role for probiotics[J]. Nutrients, 2019, 11(11):2690.

DOI

[9]
MA L Y, TAO S Y, SONG T X, et al. Clostridium butyricum and carbohydrate active enzymes contribute to the reduced fat deposition in pigs[J]. iMeta, 2024, 3(1):e160.

DOI

[10]
王威皓, 窦露, 康乐天, 等. 日粮添加丁酸梭菌对小尾寒羊脂肪酸代谢和肉品质的影响[J]. 食品科学, 2023, 44(19):1-9.

WANG W H, DOU L, KANG L T, et al. Effect of dietary Clostridium butyricum on fatty acid metabolism and meat quality of small-tailed Han sheep[J]. Food Science, 2023, 44(19):1-9. (in Chinese)

DOI

[11]
KIM M J, KIM Y L, LEE S H, et al. Effects of Clostridium butyricum on physiological parameters and gut microbiota in newborn Hanwoo calves[J]. Animals, 2025, 15(19):2785.

DOI

[12]
林华林, 秦颖超, 周加义, 等. 丁酸梭菌及其代谢产物对畜禽肠道健康影响的研究进展[J]. 饲料工业, 2019, 40(6):7-12.

LIN H L, QIN Y C, ZHOU J Y, et al. Research progress on the effects of Clostridium butyricum and its metabolites on intestinal health of livestock[J]. Feed Industry, 2019, 40(6):7-12. (in Chinese)

[13]
LEE S, GOODSON M, VANG W, et al. 2’-fucosyllactose supplementation improves gut-brain signaling and diet-induced obese phenotype and changes the gut microbiota in high fat-fed mice[J]. Nutrients, 2020, 12(4):1003.

DOI

[14]
LIU X, QIU X Y, YANG Y, et al. Alteration of gut microbiome and metabolome by Clostridium butyricum can repair the intestinal dysbiosis caused by antibiotics in mice[J]. iScience, 2023, 26(3):106190.

DOI

[15]
GAO X N, LIU X T, WANG Y L, et al. Effects of Clostridium butyricum on intestinal microflora and metabolism of Eriocheir sinensis[J]. International Journal of Molecular Sciences, 2023, 24(18):13784.

DOI

[16]
LU J X, HUANG Y T, ZHANG Y J, et al. Quercetin ameliorates obesity and inflammation via microbial metabolite indole-3-propionic acid in high fat diet-induced obese mice[J]. Frontiers in Nutrition, 2025, 12:1574792.

DOI

[17]
MARIAT D, FIRMESSE O, LEVENEZ F, et al. The Firmicutes/Bacteroidetes ratio of the human microbiota changes with age[J]. BMC Microbiol, 2009, 9:123.

DOI PMID

[18]
BRAGA J D, YANG Y S, NAGAO T, et al. Fructooligosaccharides and Aspergillus enzymes increase brain GABA and homocarnosine by modulating microbiota in adolescent mice[J]. NPJ Science of Food, 2025, 9(1):48.

DOI

[19]
FAN Y, XIAO Y, ZHANG S, et al. A comprehensive review on the potential therapeutic benefits of prospective probiotic Christensenella minuta[J]. Food Science and Human Wellness, 2025, 14(6):9250129.

DOI

[20]
HUANG W, ZHU W, LIN Y, et al. Roseburia hominis improves host metabolism in diet-induced obesity[J]. Gut Microbes, 2025, 17(1):2467193.

DOI

[21]
LIAO J Y, LIU Y L, YAO Y, et al. Clostridium butyricum strain CCFM1299 reduces obesity via increasing energy expenditure and modulating host bile acid metabolism[J]. Nutrients, 2023, 15(20):4339.

DOI

[22]
SHANG Y Y, WU Y W, ZHANG Y, et al. Garvicin Q-producing Lactococcus garvieae LG3092:its role in mitigating dysbiosis and H. pylori-associated gastritis[J]. NPJ Biofilms and Microbiomes, 2025, 11(1):224.

DOI

[23]
HOSOMI K, SAITO M, PARK J, et al. Oral administration of Blautia wexlerae ameliorates obesity and type 2 diabetes via metabolic remodeling of the gut microbiota[J]. Nature Communications, 2022, 13(1):4477.

DOI

[24]
LI X, HUANG G W, ZHANG Y N, et al. Succinate signaling attenuates high-fat diet-induced metabolic disturbance and intestinal barrier dysfunction[J]. Pharmacological Research, 2023, 194:106865.

DOI

[25]
WANG F, FENG J Q, YAO M, et al. Dietary succinate reduces fat deposition through gut microbiota and lipid metabolism in broilers[J]. Poultry Science, 2024, 103(8):103954.

DOI

[26]
LIU Q, ZHANG Z P, JI P, et al. Ginseng polysaccharide components attenuate obesity and liver lipid accumulation by regulating fecal microbiota and hepatic lysine degradation[J]. International Journal of Biological Macromolecules, 2024, 269(Pt 1):131872.

DOI

[27]
NIU Y G, HU X M, SONG Y L, et al. Blautia coccoides is a newly identified bacterium increased by leucine deprivation and has a novel function in improving metabolic disorders[J]. Advanced Science, 2024, 11(18):2309255.

DOI

[28]
ANJOM-SHOAE J, FITZGERALD P C E, HOROWITZ M, et al. Dose-related effects of calcium to enhance the effects of L-tryptophan on gut hormones and energy intake in obesity[J]. The Journal of Clinical Endocrinology and Metabolism, 2025, 110(9):e2929-e2938.

DOI

[29]
YE L, HOU Y L, HU W Y, et al. Repressed blautia-acetate immunological axis underlies breast cancer progression promoted by chronic stress[J]. Nature Communications, 2023, 14(1):6160.

DOI PMID

[30]
KAIDA Y, TAGUCHI K, FUKAMI K. Carnitine deficiency in chronic kidney disease:pathophysiology,clinical implications,and therapeutic perspectives[J]. Nutrients, 2025, 17(13):2084.

DOI

[31]
FALLAH F, MAHDAVI R. Modulatory effects of multi-species/multi-strain synbiotic and L-carnitine concomitant supplementation on atherogenic-indices,body composition,visceral obesity,and appetite in metabolically healthy women with obesity:a double-blind randomized controlled clinical trial[J]. Probiotics and Antimicrobial Proteins, 2025, 17(6):5167-5183.

DOI

[32]
EDIGIN E, ASEMOTA I R, OLISA E, et al. Carotenemia:a case report[J]. Cureus, 2019, 11(7):e5218.

[33]
MOCK E D, GAGESTEIN B, VAN DER STELT M. Anandamide and other N-acylethanolamines:a class of signaling lipids with therapeutic opportunities[J]. Progress in Lipid Research, 2023, 89:101194.

DOI

[34]
OULDAMER L, JOURDAN M L, PINAULT M, et al. Accumulation of arachidonic acid,precursor of pro-inflammatory eicosanoids,in adipose tissue of obese women:association with breast cancer aggressiveness indicators[J]. Biomedicines, 2022, 10(5):995.

DOI

[35]
WEN Y, SHANG Y W, WANG Q. Exploration of the mechanism of linoleic acid metabolism dysregulation in metabolic syndrome[J]. Genetics Research, 2022, 2022(1):6793346.

[36]
WANG Q X, LIANG J R, ZOU Q H, et al. Tryptophan metabolism-regulating probiotics alleviate hyperuricemia by protecting the gut barrier integrity and enhancing colonic uric acid excretion[J]. Journal of Agricultural and Food Chemistry, 2024, 72(48):26746-26761.

DOI PMID

文章导航

/