研究论文

猪源副干酪乳酪杆菌27-2高效表达调控元件的筛选与功能验证

  • 杨义杰 , 1 ,
  • 尹方洁 1, * ,
  • 郭怡婷 1 ,
  • 贾烁 1 ,
  • 马莹莹 1, 2 ,
  • 赵洪哲 1, 2 ,
  • 崔文 1, 2 ,
  • 姜艳平 1, 2 ,
  • 唐丽杰 1, 2 ,
  • 李佳璇 1, 2 ,
  • 李一经 , 1, 2, ** ,
  • 王晓娜 , 1, 2, **
展开
  • 1 东北农业大学动物医学学院, 哈尔滨 150030
  • 2 动物疾病防控技术与制剂创制省重点实验室, 哈尔滨 150030
** 李一经,教授,博士生导师,E-mail: ;
王晓娜,副教授,博士生导师,E-mail:

* 同等贡献作者

杨义杰(2002—),女,河南驻马店人,硕士研究生,从事动物微生物学与免疫学研究。E-mail:

Office editor: 武海龙

收稿日期: 2026-01-17

  网络出版日期: 2026-09-12

基金资助

国家自然科学基金(32573406)

Screening and Functional Verification of High-Efficiency Expression Regulatory Elements in Porcine-Derived Lactobacillus paracasei 27-2

  • YANG Yijie , 1 ,
  • YIN Fangjie 1 ,
  • GUO Yiting 1 ,
  • JIA Shuo 1 ,
  • MA Yingying 1, 2 ,
  • ZHAO Hongzhe 1, 2 ,
  • CUI Wen 1, 2 ,
  • JIANG Yanping 1, 2 ,
  • TANG Lijie 1, 2 ,
  • LI Jiaxuan 1, 2 ,
  • LI Yijing , 1, 2, ** ,
  • WANG Xiaona , 1, 2, **
Expand
  • 1 College of Veterinary Medicines, Northeast Agricultural University, Harbin 150030, China
  • 2 Provincial Key Laboratory of Animal Disease Prevention and Control Technology and Preparation Creation, Harbin 150030, China
** LI Yijing, professor, E-mail: ;
WANG Xiaona, associate professor, E-mail:

* Contributed equally

Received date: 2026-01-17

  Online published: 2026-09-12

摘要

本研究旨在利用液相色谱-串联质谱(LC-MS/MS)技术筛选猪源副干酪乳酪杆菌(L.paracasei)27-2基因组中高效表达调控元件。以荧光素酶(Luciferase)为报告基因,构建重组乳酸菌表达载体系统,通过Luciferase活性检测、实时荧光定量PCR(qPCR)和Western blot定量分析来验证调控元件的启动效率。结果表明:猪源L.paracasei 27-2菌液上清经LC-MS/MS鉴定后,通过Uniprot数据库确定分泌量前3位蛋白分别为TolA家族蛋白、细胞外溶质结合蛋白家族5和肽聚糖水解酶,其对应的上游调控元件分别命名为N1、N2、N3。重组菌pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2、pPG-N3-Luciferase/27-2均能成功表达Luciferase蛋白。重组菌pPG-N1-Luciferase/27-2在上清和沉淀中的Luciferase活性、mRNA相对表达量及蛋白相对表达量均极显著高于重组菌pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2(P<0.01),即3种调控元件驱动Luciferase蛋白表达的强度顺序为N1>N2>N3。综上所述,本研究从L.paracasei 27-2基因组中筛选获得的N1调控元件具有高效启动活性,基于该元件构建的重组菌表达系统可提升外源蛋白表达效率,为开发适配动物肠道环境的高效乳酸菌活菌载体系统、推动其在动物营养强化及疫病防控中的应用提供了关键理论依据。

本文引用格式

杨义杰 , 尹方洁 , 郭怡婷 , 贾烁 , 马莹莹 , 赵洪哲 , 崔文 , 姜艳平 , 唐丽杰 , 李佳璇 , 李一经 , 王晓娜 . 猪源副干酪乳酪杆菌27-2高效表达调控元件的筛选与功能验证[J]. 动物营养学报, 2026 , 38(9) : 7090 -7101 . DOI: 10.12418/CJAN2026.565

Abstract

This study aimed to screen the high-efficiency expression regulatory elements from the genome of porcine-derived Lactobacillus paracasei 27-2 using liquid chromatography-tandem mass spectrometry (LC-MS/MS) technology. A recombinant lactic acid bacteria expression system was constructed using luciferase (Luciferase) as a reporter gene, and the transcriptional activation efficiency of regulatory elements was evaluated through Luciferase activity detection, real-time fluorescence quantification PCR (qPCR) and Western blot analysis. The results showed that three highly secreted proteins of L. paracasei 27-2 were identified from the culture supernatant by LC-MS/MS and annotated using the UniProt database, including the TolA family protein, extracellular solute-binding protein family 5 and peptidoglycan hydrolase. The corresponding upstream regulatory elements were designated as N1, N2, and N3, respectively. The recombinant strains of pPG-N1-Luc/27-2, pPG-N2-Luc/27-2 and pPG-N3-Luc/27-2 were successfully expressed Luciferase protein. The recombinant strain of pPG-N1-Luc/27-2 exhibited significantly higher Luciferase activities, mRNA relative expression levels and protein relative expression levels in supernatant and precipitation compared with recombinant strains of pPG-N2-Luc/27-2 and pPG-N3-Luc/27-2 (P<0.01), which indicated that the strength sequence of Luciferase protein expression driven by three regulatory elements followed the order N1>N2>N3. In conclusion, the N1 regulatory element identified from the genome of L. paracasei 27-2 exhibits strong promoter activity. The constructed recombinant bacterial expression system based on N1 regulatory element can enhance the expression efficiency of heterologous proteins, providing a critical theoretical foundation for the development of high-efficiency live carrier of lactic acid bacteria systems adapted to the intestinal environment of livestock and promoting their applications in animal nutritional enhancement and disease prevention.

乳酸菌(lactic acid bacteria,LAB)作为一类参与人和动物肠道中食物和饲料的发酵益生菌群,被认定为公认安全级(generally recognized as safe,GRAS)微生物[1-2],在维持肠道微生态平衡、提升宿主免疫功能等方面发挥核心作用,尤其在动物营养与健康领域具有重要应用价值[3]。副干酪乳酪杆菌(Lacticaseibacillus paracasei,L.paracasei)是乳酪杆菌属中典型的益生菌代表,广泛分布于自然环境及人和动物肠道中[4],在维护健康方面发挥着重要的作用[5-6]。在动物养殖中,L.paracasei可调节肠道菌群结构、改善营养物质消化吸收效率、增强机体抗病能力,成为替代抗生素、提升养殖效益的关键微生态制剂原料[7-10]
随着基因工程技术的发展,乳酸菌的基因改造成为提升其益生功能的重要路径,通过构建重组乳酸菌表达系统,可实现外源抗原、功能性肽/蛋白等分子的定向表达,为口服疫苗开发、精准营养强化制剂研发提供了全新技术方向[11]。然而,当前乳酸菌表达系统普遍存在异源蛋白产量偏低的问题,严重制约了其产业化应用进程,也是限制其作为口服疫苗递送载体的关键瓶颈。调控元件作为基因表达的核心“开关”,其活性直接决定转录效率和蛋白合成水平[12-13]。因此,筛选菌株自身源性的高效表达调控元件,构建同源表达系统,成为提升益生菌功能潜力的核心策略。相较于传统的生物学信息预测和质粒筛选方法,液相色谱-串联质谱(LC-MS/MS)技术凭借高灵敏度、高分辨率的优势,可直接通过检测细胞内蛋白表达,反向追溯其上游调控元件的活性强度,为高效表达调控元件的精准筛选提供了全新技术路径。
在乳酸菌表达系统的研究中,报告基因是评价调控元件驱动外源蛋白表达效率的核心工具。如袁世豪等[14]利用荧光素酶(luciferase,Luciferase)、增强型绿色荧光蛋白(enhanced green fluorescent protein,EGFP)和氨苄青霉素抗性基因(ampicillin resistance gene,AmpR)报告基因表达系统综合评价不同组成型启动子在乳酸菌组成型表达系统中驱动外源蛋白表达效率,发现L-乳酸脱氢酶基因启动子(promoter of L-lactate dehydrogenase gene,Pldh)驱动Luciferase、EGFP和AmpR外源蛋白的活性均显著高于增强型地衣芽胞杆菌转运透性酶基因启动子(enhanced promoter of transporter permease gene from Bacillus licheniformis,Phh)和地衣芽孢杆菌转运透性酶基因启动子(promoter of transporter permease gene from Bacillus licheniformis,Phce)。刘芯孜等[15]基于PldhAmpR报告基因构建了重组L.paracasei多启动子系统,证明启动子数量与外源基因表达量呈正相关。但是传统筛选方法难以精准匹配猪源菌株的遗传背景,导致筛选获得的调控元件在同源宿主中的表达效率不稳定。
基于此,本研究以猪源L.paracasei 27-2为研究对象,采用LC-MS/MS技术对菌株胞内蛋白进行定性和定量分析,通过筛选高丰度表达蛋白的上游调控元件(包括启动子、核糖体结合位点等),获得具有潜在高效表达活性的候选调控元件;进一步通过构建Luciferase报告基因表达载体,在同源宿主中系统验证候选元件的转录活性和表达效率,最终筛选出适配性强、表达效率稳定的高效表达调控元件。猪源L.paracasei 27-2高效表达调控元件的精准筛选与功能验证,可为构建适配猪肠道环境的同源高效表达系统提供关键元件支撑,同时为猪源益生菌的功能基因高效表达及产业化应用(如猪用精准营养强化制剂、口服疫苗载体开发)奠定基础。

1 材料与方法

1.1 试验材料

猪源L.paracasei 27-2、pPG-PPT、pG5-Luciferase质粒均由东北农业大学动物医学学院微生物学实验室保存;大肠杆菌DH5α、TG1感受态细胞和pMD19T载体购自上海唯地生物技术有限公司;KOD-plus-neo高保真PCR聚合酶、溶菌酶购自北京索莱宝生物科技有限公司;2×CE同源重组酶和总RNA抽提试剂盒购自南京诺唯赞生物科技股份有限公司;细菌基因组提取试剂盒购自哈尔滨市青蛙生物科技有限责任公司;Luciferase Assay System购自普洛麦格(北京)生物技术有限公司;限制性内切酶Xba Ⅰ和Apa Ⅰ和预染蛋白Marker购自赛默飞世尔科技(中国)有限公司;辣根过氧化物酶(horseradish peroxidase,HRP)标记的山羊抗鼠免疫球蛋白G(IgG)和异硫氰酸荧光素(fluorescein isothiocyanate,FITC)标记的山羊抗鼠IgG购自博尔西(北京)科技有限公司;十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶试剂盒购自赛文创新(北京)生物科技有限公司;罗氏染料Ligh-Cycler480 SYBR Green Ⅰ Master购自上海罗氏制药有限公司。

1.2 猪源L.paracasei 27-2高效表达调控元件的筛选

将猪源L.paracasei 27-2菌液上清进行LC-MS/MS鉴定,并通过Uniprot数据库(https://www.uniprot.org)确定分泌量前3位蛋白,参考NCBI网站GenBank中的L.paracasei ATCC 25302(GenBank登录号:GCA_000159495.1)基因序列分别确定3种蛋白的调控序列,并分别命名为N1、N2、N3。

1.3 引物设计与合成

用Primer Premier 5.0软件进行引物设计,引物序列信息见表1
表1 引物序列信息

Table 1 Primer sequence information

引物名称
Primer names
引物序列
Primer sequence (5'—3')
产物大小
Product size/bp
扩增片段
Amplicon
N1 F:AAGTGAAACGGCATCTGTTTGAC
R:GTTCGTATTCCTCCTG
210 N1
N2 F:TTGGGTGACGGGATCACTTG
R:CATAAAAAATT
105 N2
N3 F:TATGTTGAAGAAAGTATTCTGATAGTAAACATG
R:CTTTATCGTCACTCCTGCTTTCGTTT
96 N3
N1-Luciferase F:ACAAACCCAGGAGGAATACGAACATGGAA
GACGCCAAAAACATAAAGAAA
1 653 N1-Luciferase
N2-Luciferase F:GTTTTGGGAGATGAATTTTTTATGGAAGACGCCAAA
AACATAAAGAAAGGCCCGGCG
1 863 N2-Luciferase
N3-Luciferase F:AAAGCAGGAGTGACGATAAAGATGGAAGACG
CCAAAAACATAAAGAAAGGC
1 749 N3-Luciferase
Luciferase R:CGCCAAAACAGCCAGATCTGAATTTACA
pMD19T F:GAGCGGATAACAATTTCACAC
R:AGGGTTTTCCCAGTCACG
19T载体通用引物 目的片段
pPG-PPT F:TATTACAGCTCCAAGATCTCC
R:CTGAAAATCTTCTCTCATCCGC
pPG载体通用引物 目的片段
Luciferase qPCR F:GATTACCAGGGATTTCAGT
R:GACACCTTTAGGCAGACC
160

Luciferase:荧光素酶;qPCR:实时荧光定量PCR real-time quantitative PCR。

1.4 表达N1/N2/N3-Luciferase表达盒重组菌的构建与鉴定

以猪源L.paracasei 27-2细菌基因组为模板,分别扩增N1、N2、N3片段。以实验室保存的质粒pG5-Luciferase为模板扩增Luciferase片段。将N1、N2、N3基因序列分别与Luciferase报告基因融合后连接至pMD19T载体,最终热转化至大肠杆菌DH5α中。以重组质粒为模板,使用pMD19T为引物进行PCR鉴定;将条带大小正确的质粒进行测序以及序列比对,阳性质粒分别命名为pMD19T-N1-LuciferasepMD19T-N2-LuciferasepMD19T-N3-Luciferase
将质粒pPG-PPTXba Ⅰ和Apa Ⅰ位点双酶切处理,与目的片段N1-LuciferaseN2-LuciferaseN3-Luciferase进行同源重组连接,最终热转化至大肠杆菌TG1中。挑取单菌落进行培养,并以抽提的质粒为模板,使用pPG-PPT为引物进行PCR鉴定,对鉴定大小正确的质粒进行测序以及序列比对。将序列比对正确的质粒分别命名为pPG-N1-LuciferasepPG-N2-LuciferasepPG-N3-Luciferase
将上述鉴定正确的阳性质粒和对照质粒pPG-PPT分别电转化到猪源L.paracasei 27-2感受态细胞中。以提取质粒为模板,采用pPG-PPT引物对重组质粒进行PCR验证,并进行测序及序列分析。阳性菌株分别命名为pPG-PPT/27-2、pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2。

1.5 Western blot鉴定

分别将pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2、pPG-N3-Luciferase/27-2和pPG-PPT/27-2重组菌培养至600 nm处吸光度(OD600)值约为1.0。菌体沉淀经溶菌酶处理后磷酸盐缓冲液(PBS)重悬菌体沉淀,进行超声破碎;上清蛋白用三氯乙酸(trichloroacetic acid,TCA)-丙酮沉淀法提取。菌体上清和沉淀蛋白样品经SDS-PAGE分离后进行免疫印迹,一抗为鼠抗Luciferase单克隆抗体;二抗为HRP标记山羊抗鼠IgG,进行Western blot鉴定,增强型化学发光(ECL)显色后观察结果。

1.6 间接免疫荧光分析

分别将pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2、pPG-N3-Luciferase/27-2和pPG-PPT/27-2重组菌培养12 h后,无菌PBS重悬洗涤3次后;以小鼠抗Luciferase为一抗,FITC标记的山羊抗鼠IgG为二抗,4',6-二脒基-2-苯基吲哚(DAPI)(1∶1 000)室温孵育5 min后,荧光显微镜下观察菌体荧光情况。

1.7 调控元件驱动Luciferase基因在重组菌表达效率的检测

1.7.1 Luciferase活性测定

取培养至OD600值约为1.0的重组菌,利用Luciferase报告系统检测Luciferase活性,在避光条件下将荧光素底物转移到Centro XS3 LB960微孔板光度计(Berthold Technologies,德国)中检测发光信号。

1.7.2 Luciferase报告基因mRNA转录水平测定

分别取培养至OD600值约为1.0的pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2重组菌,将上清和处理后的菌体利用RNA抽提试剂盒提取总RNA并反转录得到cDNA,统一浓度后,以Cm为管家基因,采用2-△△Ct公式计算Luciferase基因的相对表达量。试验重复3次,每次试验每个样品3个重复。

1.7.3 Luciferase蛋白表达定量分析

采用BCA法对重组菌上清和沉淀蛋白进行定量,随后每孔上样30 μg蛋白后进行Western blot分析,操作同1.6。试验重复3次,使用Image J 1.54g软件进行灰度值分析[16]

1.8 高效表达效率调控元件核心功能区域的鉴定

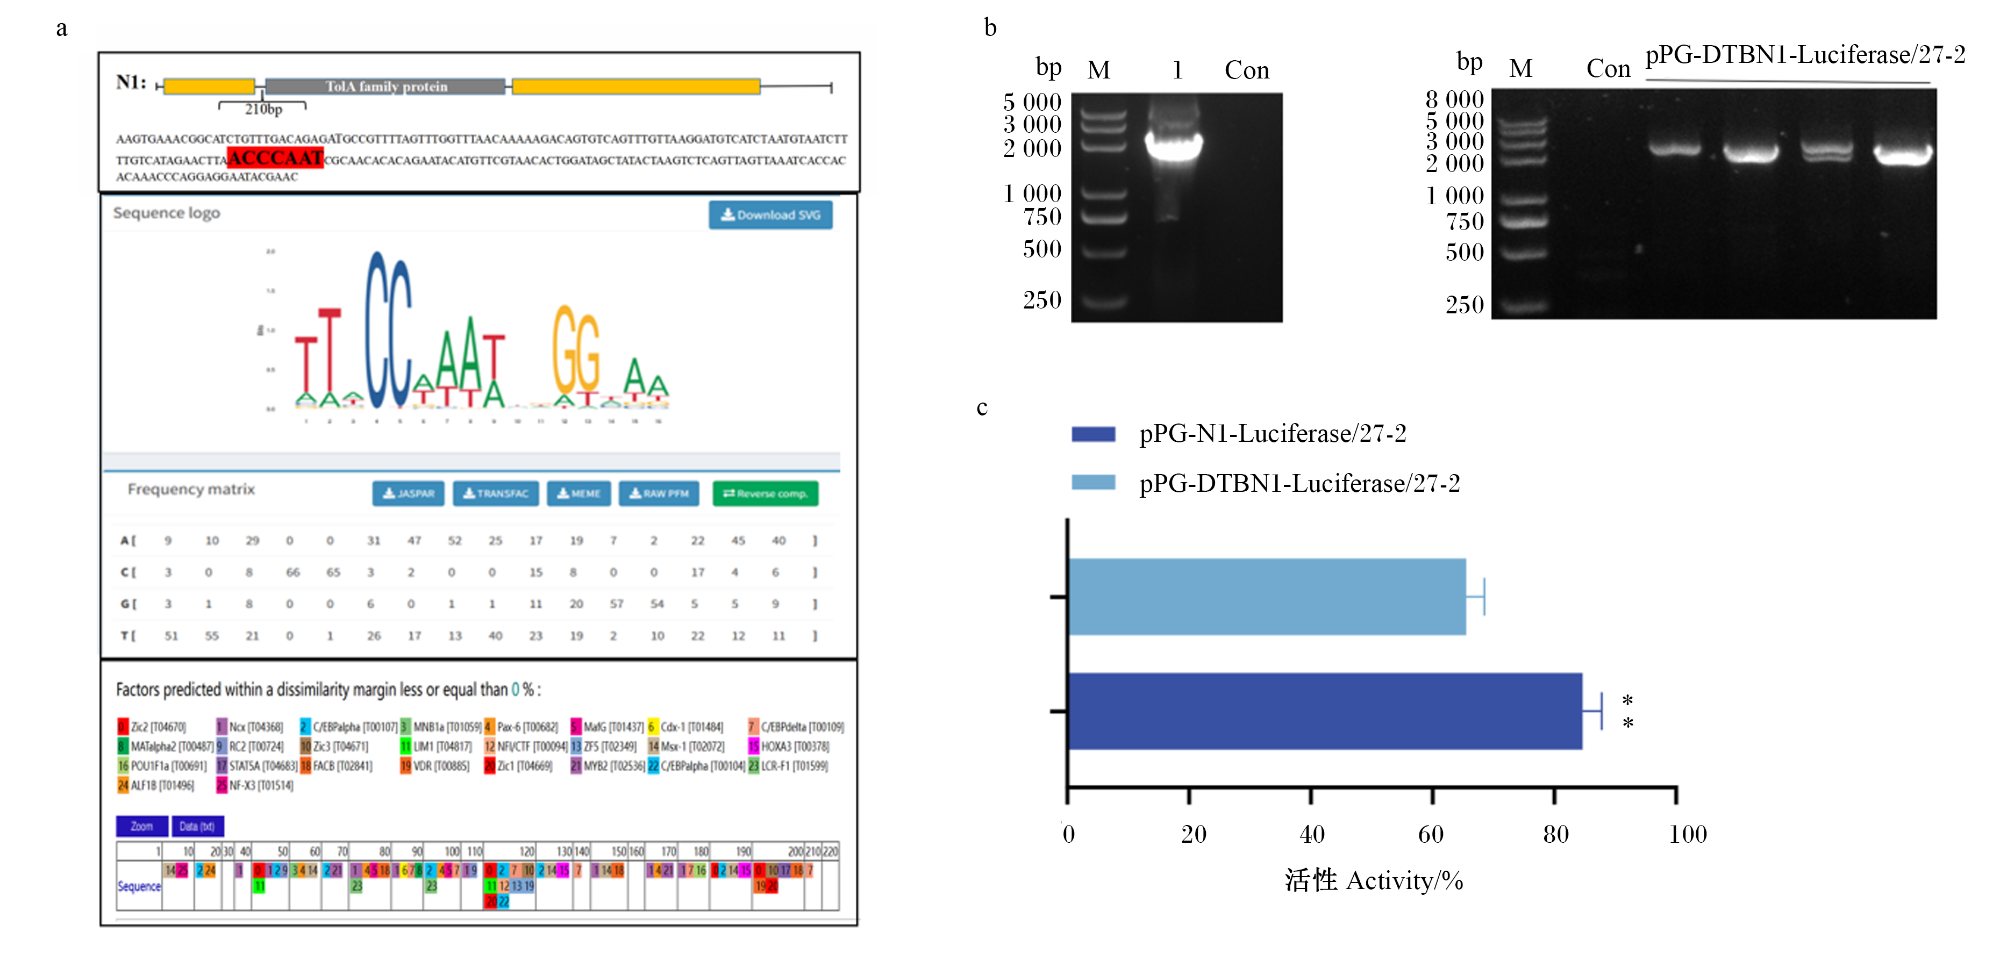
基于N1、N2、N3调控元件对Luciferase表达效率检测结果与LC-MS/MS鉴定结果相一致,确定N1为表达效率最高的元件。利用生物信息学软件JASPAR(http://jaspar.elixir.no)和Animal TFDB v4.0(http://bioinfo.life.hust.edu.cn/AnimalTFDB4/#)预测N1调控序列中发挥关键作用的转录因子结合位点(TFBS)。以N1基因序列为参考,对启动子中潜在的转录因子结合位点进行定点突变。通过Luciferase报告系统,将pPG-DTBN1-Luciferase/27-2与pPG-N1-Luciferase/27-2重组菌上清和沉淀进行启动活性比较。

1.9 数据统计分析

利用GraphPad Prism 10.1.2软件对试验数据进行处理和统计分析。结果采用“平均值±标准差( $\stackrel{-}{\mathit{X}}$±s)”表示,利用单因素方差分析(one-way ANOVA)方法和Tukey的多重比较检验方法比较差异的显著性。P<0.05表示差异显著,P<0.01表示差异极显著,P>0.05表示无显著差异。

2 结果

2.1 猪源L.paracasei 27-2高效表达调控元件的筛选

猪源L.paracasei 27-2菌液上清经LC-MS/MS鉴定后,结果通过Uniprot数据库确定分泌量前3位蛋白分别为TolA家族蛋白、细胞外溶质结合蛋白家族5和肽聚糖水解酶,如表2图1所示。通过NCBI网站分别确定3种蛋白的调控序列,并分别命名为N1、N2、N3。
表2 猪源L.paracasei 27-2基因组高分泌蛋白的筛选结果

Table 2 Screening results of highly secreted proteins from L.paracasei 27-2 genome of porcine origin

项目Items 名称Name 登录号Accession number
N1 TolA家族蛋白TolA family protein K6S4Z3
N2 细胞外溶质结合蛋白家族5 extracellular solute-binding protein family 5 A0A5Q8BPP9
N3 肽聚糖水解酶peptidoglycan hydrolase A0A8B5R4M7
图1 调控元件N1、N2、N3的序列结构和信号肽预测分析

Fig.1 Sequence structure and signal peptide prediction analysis of regulatory elements N1, N2 and N3

2.2 表达N1/2/3-Luciferase表达盒重组菌的构建与鉴定

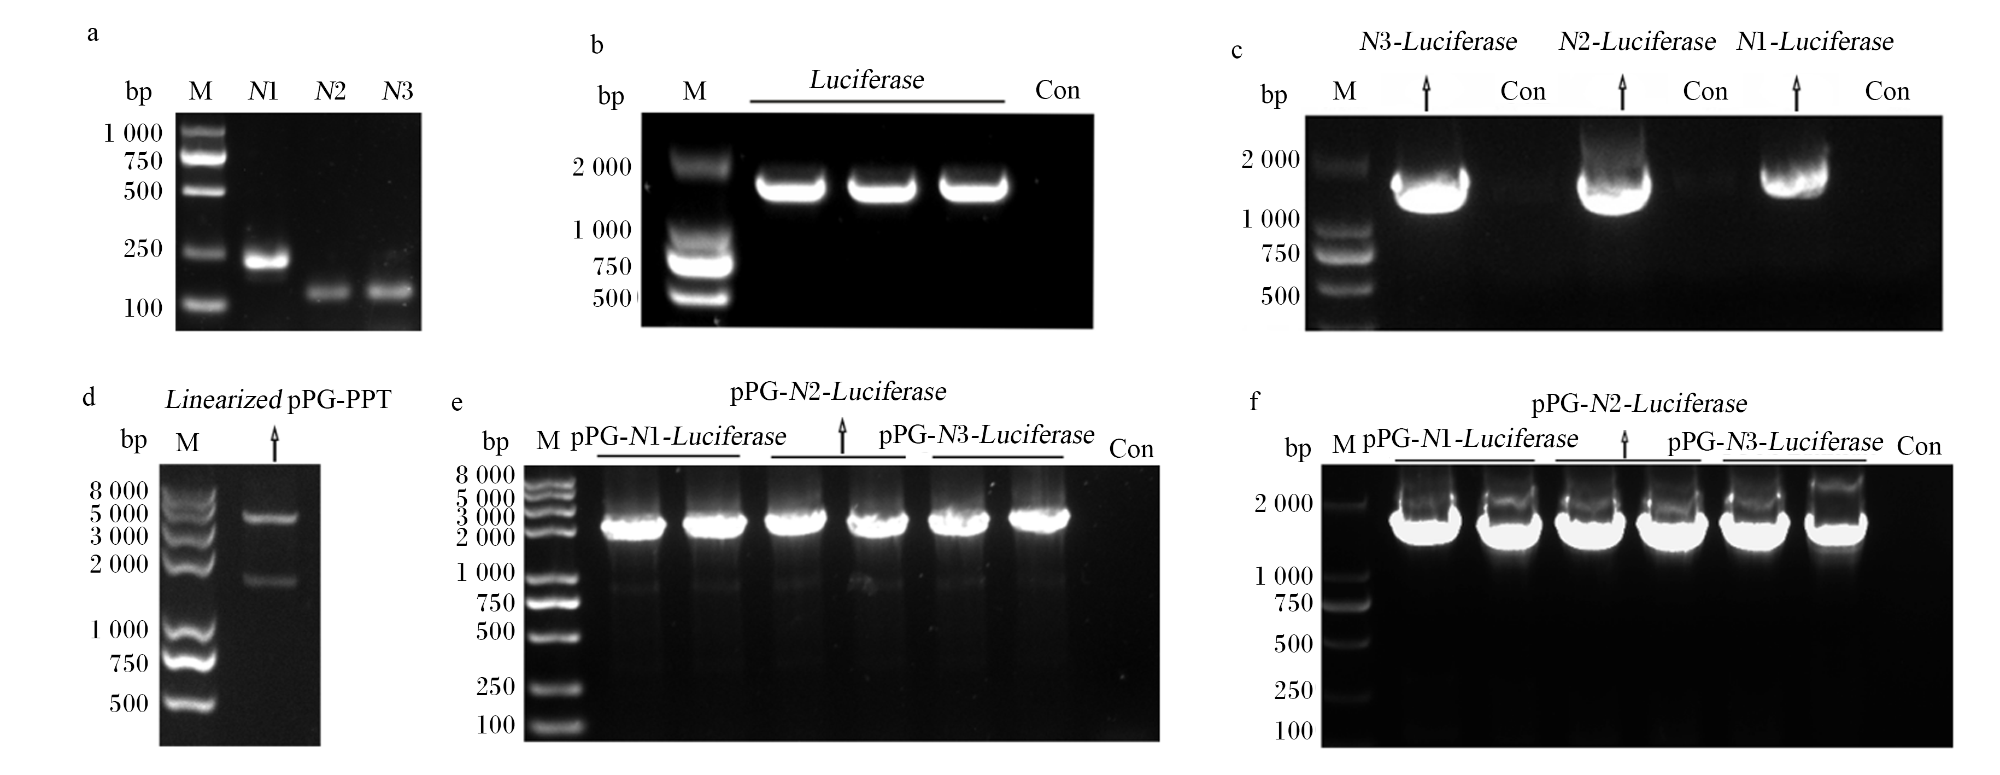
PCR分别获取210、105和96 bp的N1、N2和N3以及1 653 bp的Luciferase片段(图2-a图2-b),将其融合后连接至pMD19T载体。利用pMD19T载体通用引物对重组质粒进行PCR鉴定,获得1 887、1 782和1 773 bp的N1-LuciferaseN2-LuciferaseN3-Luciferase片段(图2-c),测序比对结果符合目的基因特征。
图2 重组菌pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2构建过程的PCR鉴定结果

a:目的基因N1、N2和N3的PCR鉴定;b:目的基因Luciferase的PCR鉴定;c:pMD19T-N1/N2/N3-Luciferase质粒PCR扩增产物;d:pPG-PPT质粒的Xba Ⅰ、Apa Ⅰ双酶切鉴定结果;e:pPG-N1/N2/N3-Luciferase表达载体PCR鉴定结果;f:重组菌的PCR鉴定结果。M:DNA分子量标准Marker;Con:阴性对照。

Fig.2 PCR identification results of recombinant bacteria pPG-N1-Luciferase/27-2, pPG-N2-Luciferase/27-2 and pPG-N3-Luciferase/27-2

a: PCR identification of the target genes N1, N2 and N3; b: PCR identification of the target gene Luciferase; c: PCR amplification products of pMD19T-N1/N2/N3-Luciferase plasmid; d: identification results of Xba Ⅰ and Apa Ⅰ double enzyme digestion of pPG-PPT plasmid; e: PCR identification results of pPG-N1/N2/N3-Luciferase expression vectors; f: PCR identification results of recombinant bacteria. M: DNA molecular weight standard Marker; Con: negative control.

pPG载体线性化后(图2-d),与重组片段N1-LuciferaseN2-LuciferaseN3-Luciferas进行同源重组。重组质粒PCR结果显示,分别在预期大小处出现N1-LuciferaseN2-LuciferaseN3-Luciferas的目的条带(图2-e),经测序后序列比对结果正确;阳性重组质粒分别命名为pPG-N1-LuciferasepPG-N2-LuciferasepPG-N3-Luciferase。阳性质粒电转至猪源L.paracasei后,对重组乳酸菌提取质粒进行PCR扩增,获得预期大小的目的条带(图2-f),测序比对结果正确,阳性菌株命名为pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2。

2.3 Luciferase蛋白的Western blot检测结果

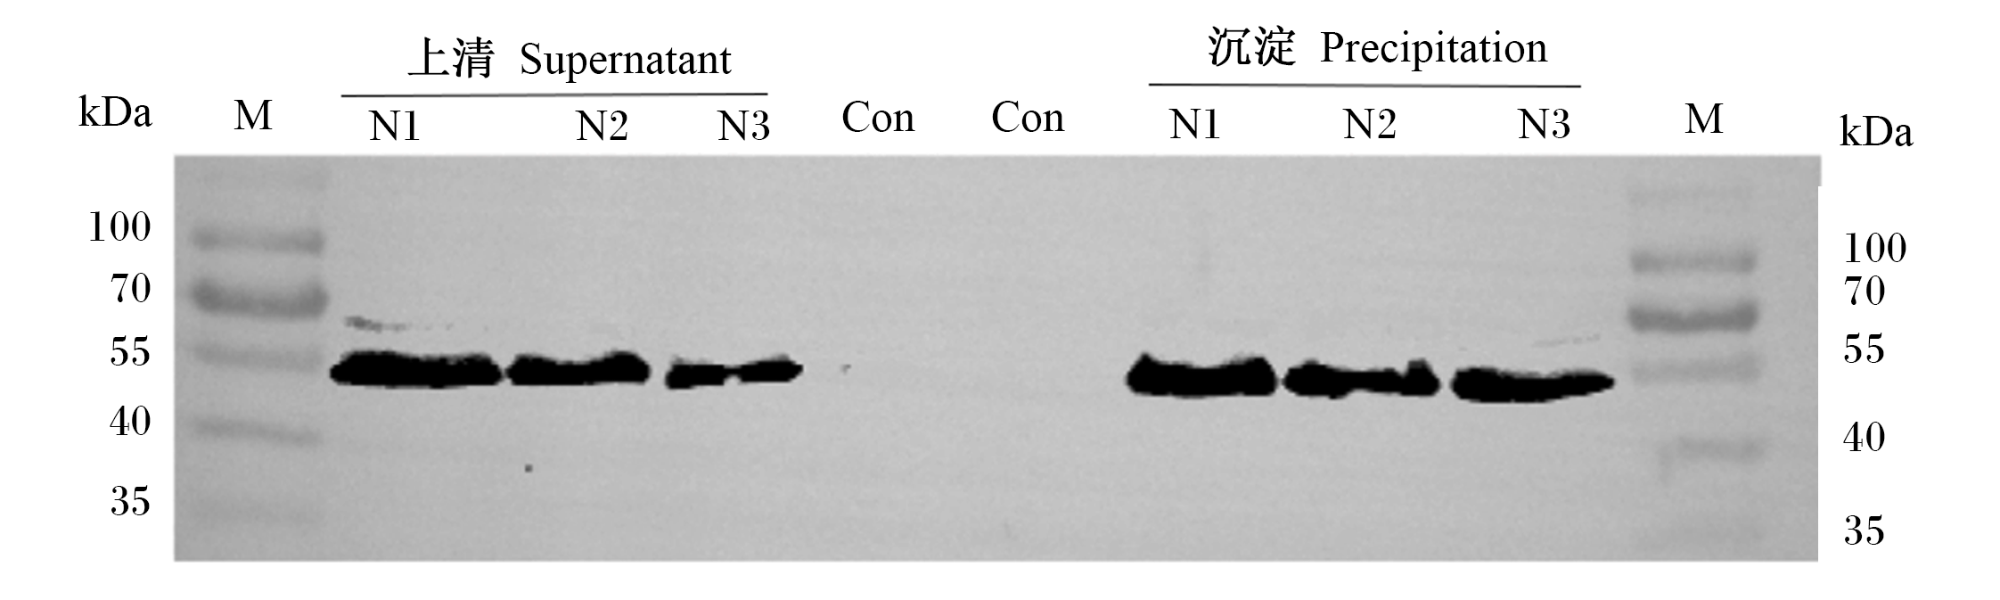
图3可见,Western blot结果显示,重组菌pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2在上清和沉淀中表达约60 kDa大小的目的蛋白,与预期大小相符;且对照重组菌pPG-PPT/27-2未出现目的条带,表明目的基因Luciferase在重组菌中得到表达。
图3 重组菌表达Luciferase的Western blot检测

M:蛋白分子量标准Marker;N1:pPG-N1-Luciferase/27-2;N2:pPG-N2-Luciferase/27-2;N3:pPG-N3-Luciferase/27-2;Con:阴性对照。

Fig.3 Western blot detection of Luciferase expressed in recombinant bacteria

M: protein molecular weight standard Marker; N1: pPG-N1-Luciferase/27-2; N2: pPG-N2-Luciferase/27-2; N3: pPG-N3-Luciferase/27-2; Con: negative control.

2.4 间接免疫荧光检测结果

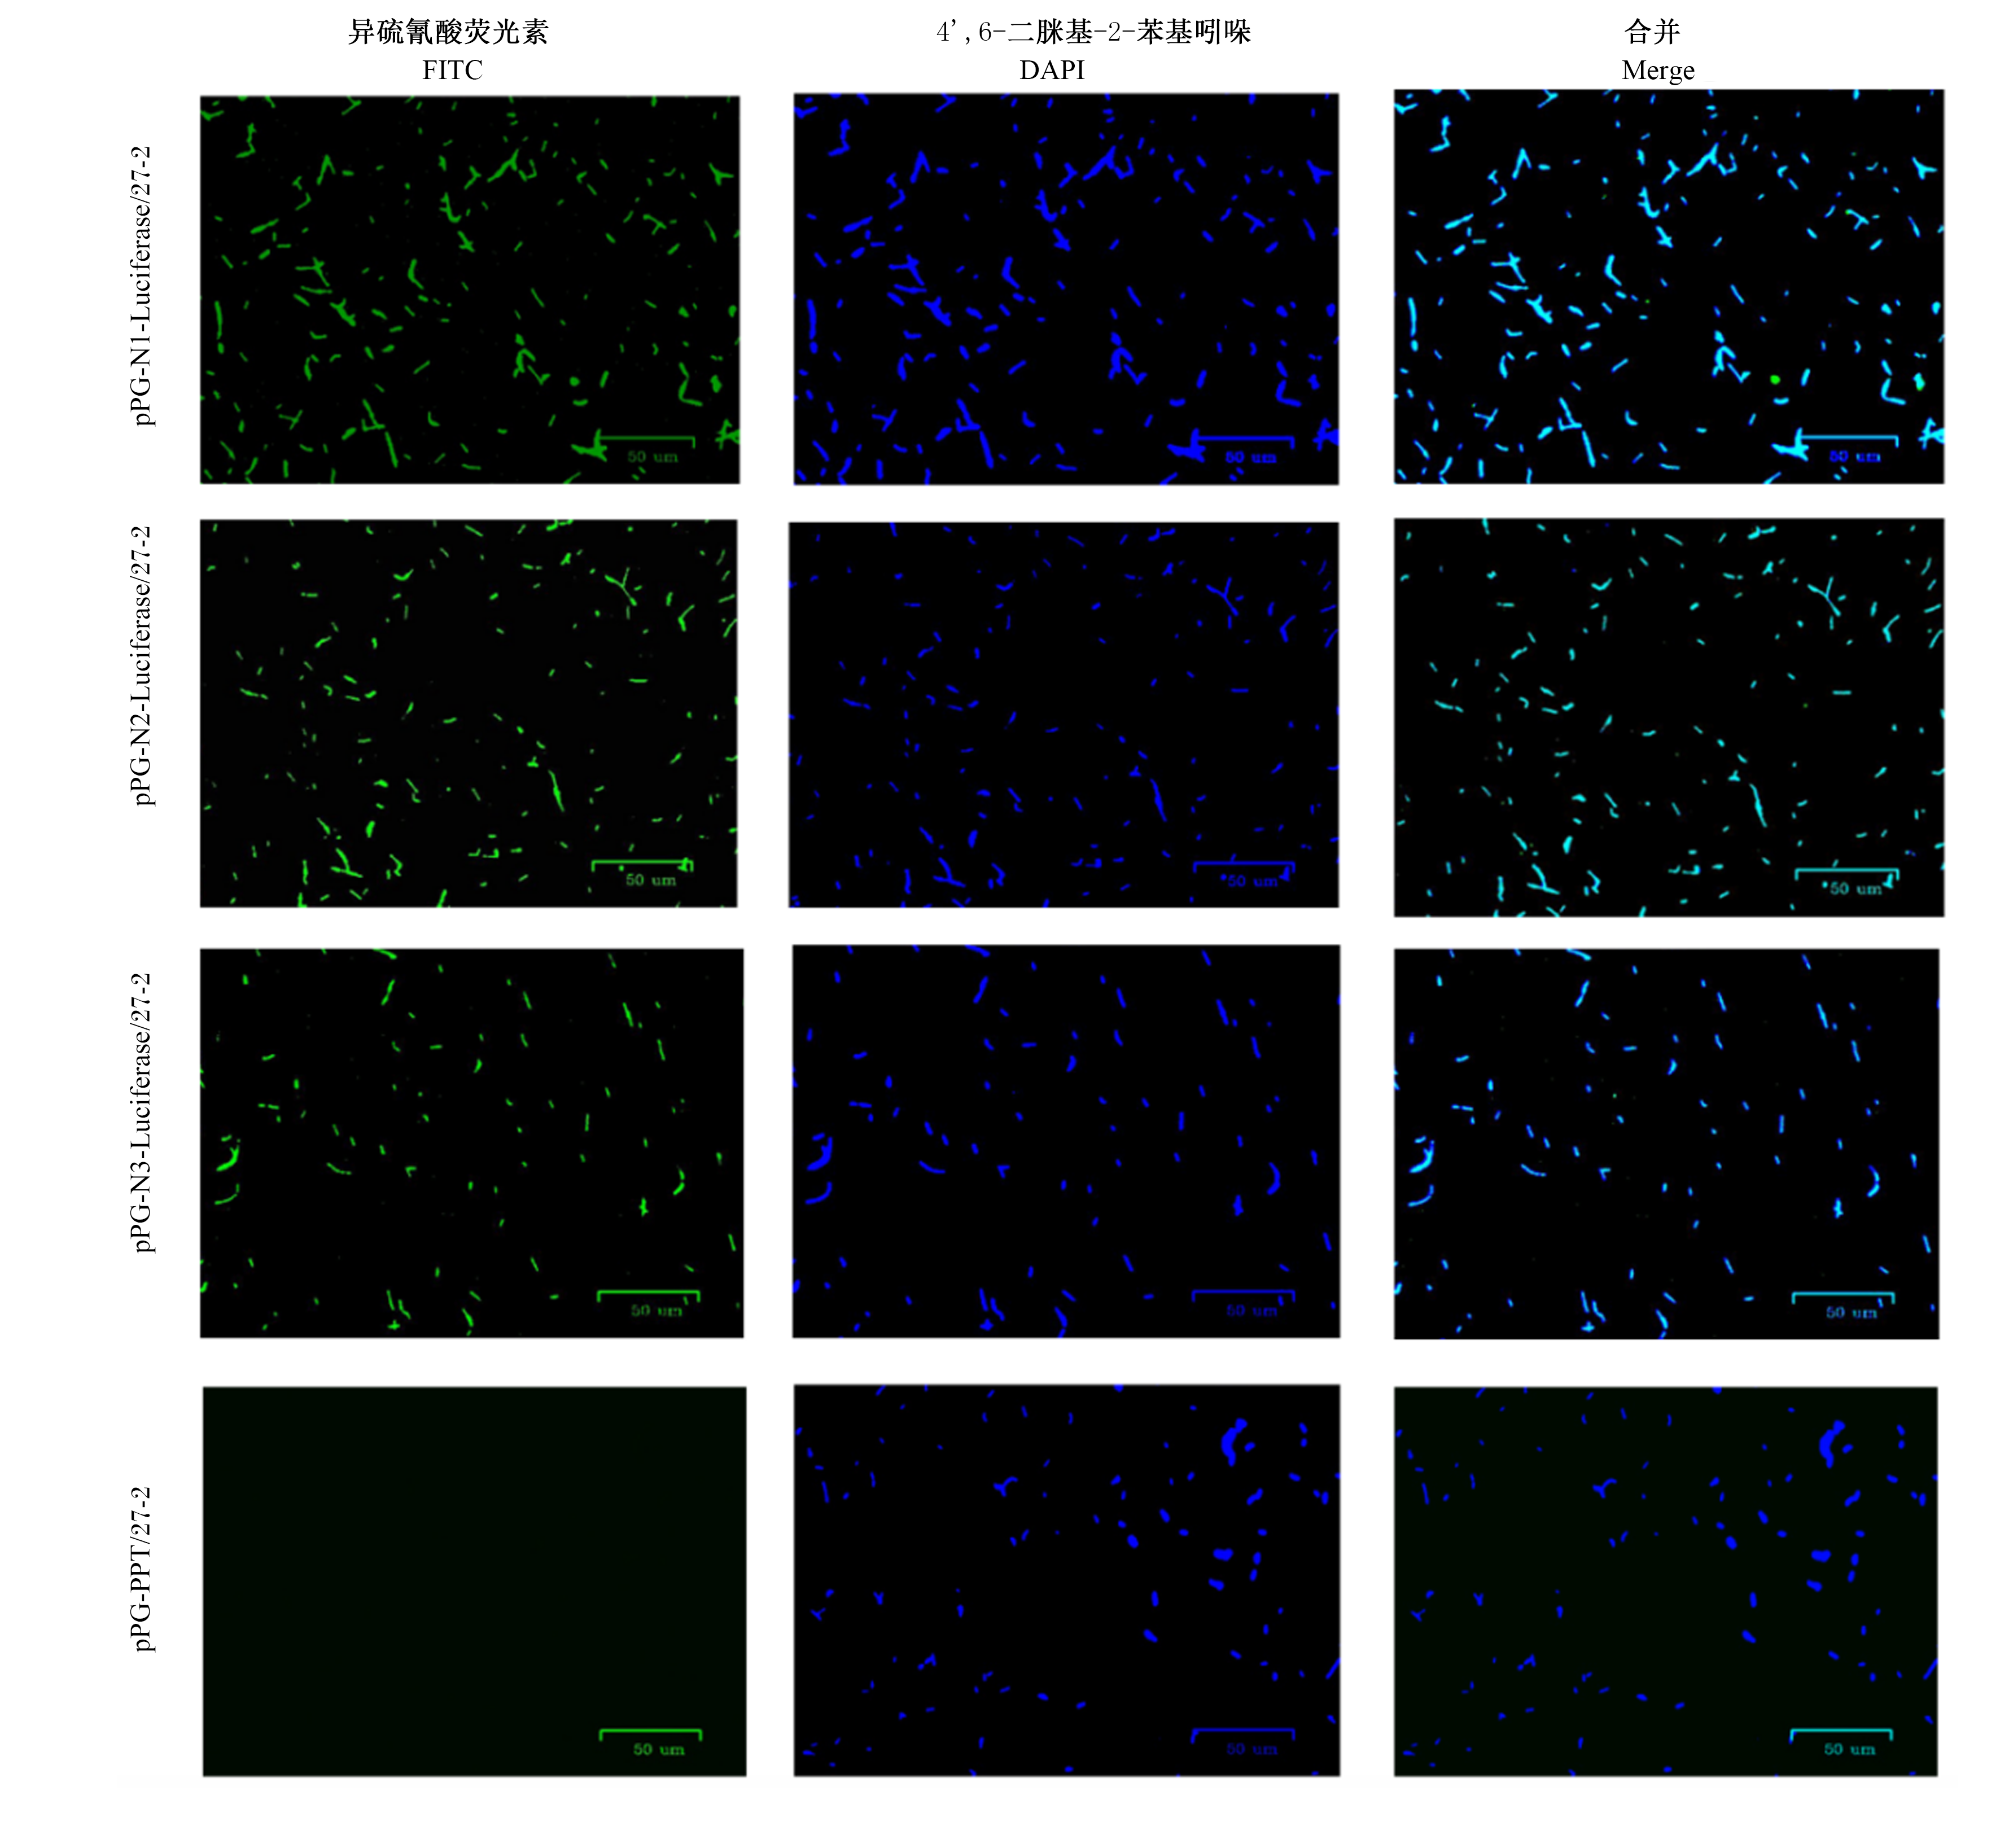
重组菌经小鼠抗Luciferase一抗和FITC标记的山羊抗鼠IgG二抗孵育后,荧光显微镜观察结果表明,重组菌pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2均呈现短杆状,菌体表面可以观察到明显绿色荧光,而对照重组菌pPG-PPT/27-2未见绿色荧光(图4)。
图4 重组菌表达Luciferase的间接免疫荧光鉴定

Fig.4 Indirect immunofluorescence identification of Luciferase expressed in recombinant bacteria

2.5 调控元件驱动Luciferase基因在重组菌表达效率的检测结果

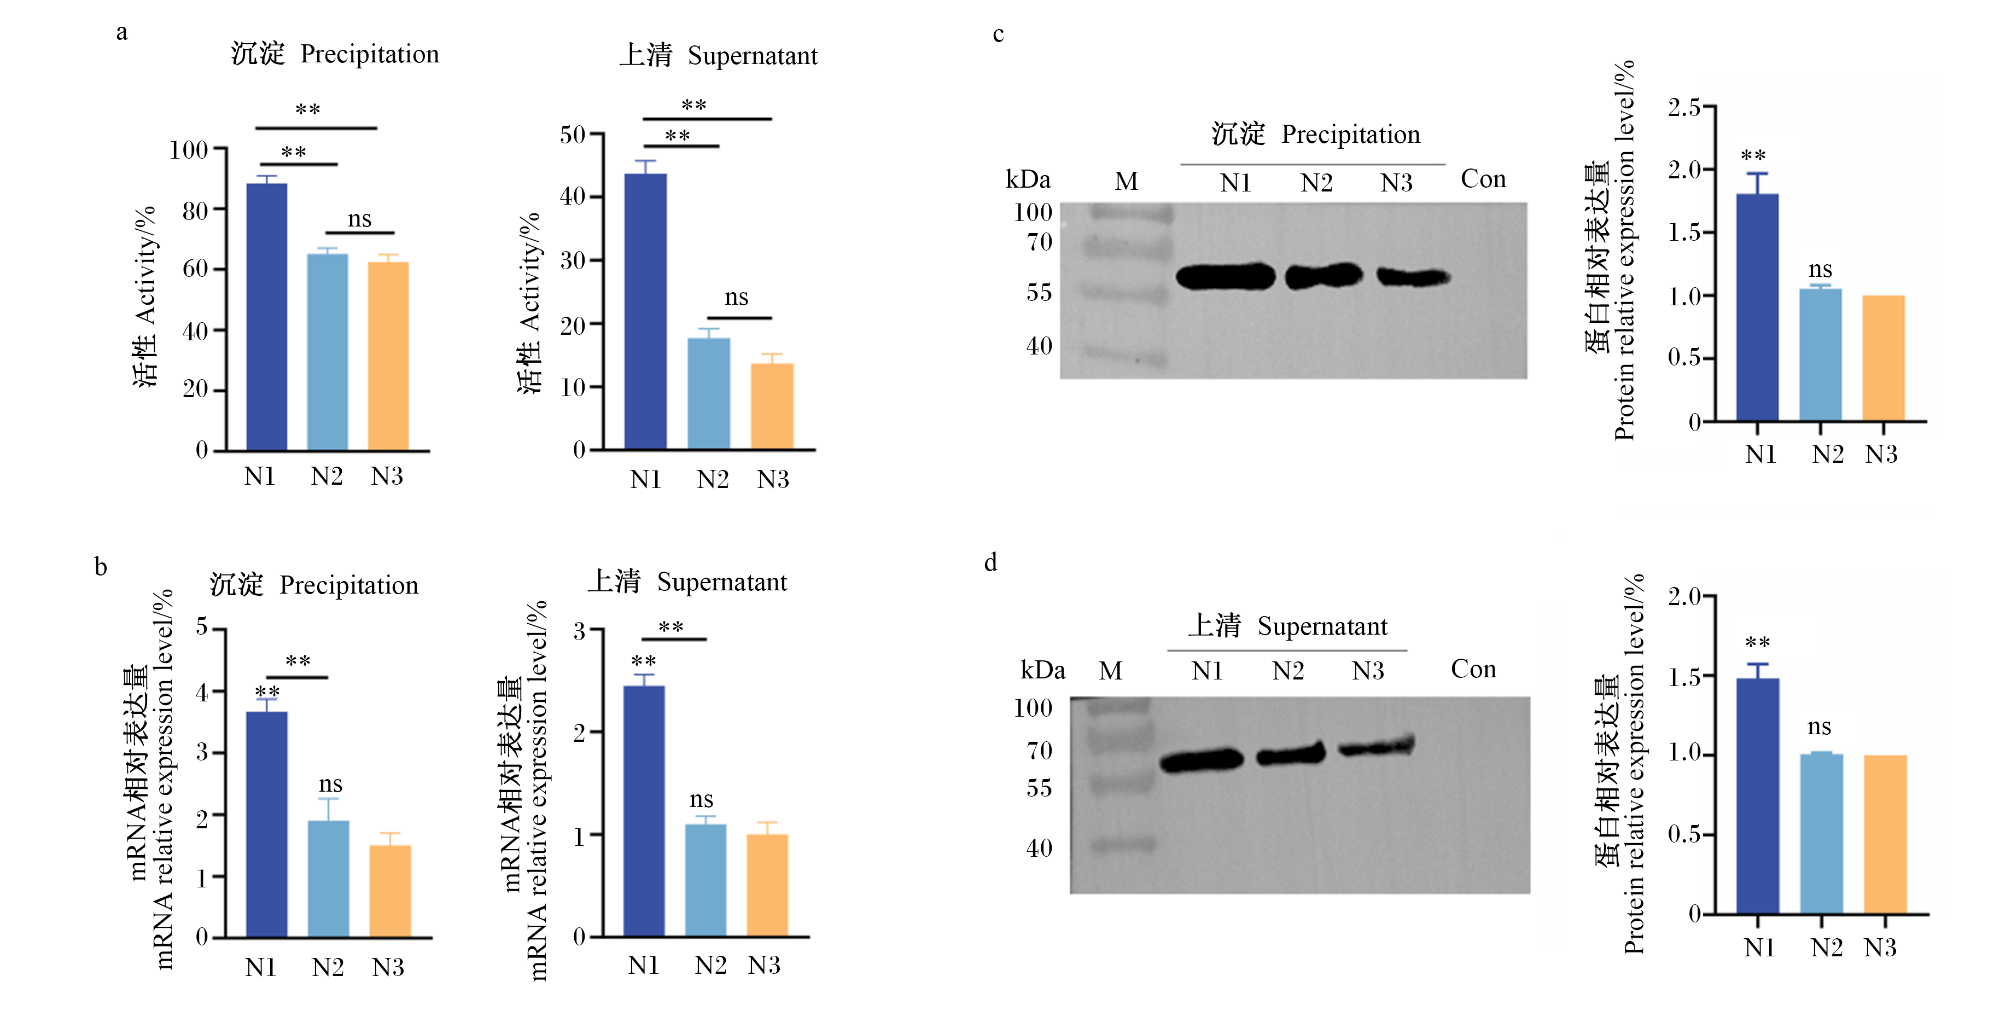
采用Luciferase报告基因检测系统、实时荧光定量PCR(qPCR)及Western blot方法,检测调控元件在启动子活性、mRNA转录、蛋白表达水平上驱动重组菌中Luciferase报告基因的表达效率。结果显示,重组菌pPG-N1-Luciferase/27-2在上清和沉淀中的Luciferase活性(图5-a)、mRNA相对表达量(图5-b)及蛋白相对表达量(图5-c图5-d)均极显著高于重组菌pPG-N2-Luciferase/27-2和pPG-N3-Luciferase/27-2(P<0.01),而重组菌pPG-N2-Luciferase/27-2与pPG-N3-Luciferase/27-2之间无显著差异(P>0.05)。
图5 调控元件驱动Luciferase基因在重组菌表达效率的检测结果

a:上清和沉淀中Luciferase活性;b:上清和沉淀中Luciferase的mRNA相对表达量;c:沉淀中Luciferase蛋白表达条带及蛋白相对表达量;d)上清中Luciferase蛋白表达条带及蛋白相对表达量。M:蛋白分子量标准Marker;N1:pPG-N1-Luciferase/27-2;N2:pPG-N2-Luciferase/27-2;N3:pPG-N3-Luciferase/27-2;Con:pPG-PPT/27-2空载阴性对照。**:显著极差异(P<0.01);ns:无显著差异(P>0.05)。

Fig.5 Detection results of expression efficiency of Luciferase gene driven by regulatory elements in recombinant bacteria

a: Luciferase activities in supernatant and precipitation; b: mRNA relative expression levels of Luciferase in supernatant and precipitation; c: Luciferase protein expression bands and protein relative expression levels in precipitation; d: Luciferase protein expression bands and protein relative expression levels in supernatant. M: protein molecular weight standard Marker; N1: pPG-N1-Luciferase/27-2; N2: pPG-N2-Luciferase/27-2; N3: pPG-N3-Luciferase/27-2; Con: pPG-PPT/27-2 empty vector negative control. **: extremely significant difference (P<0.01); ns: no significant difference (P>0.05).

2.6 高效表达效率调控元件核心功能区域的鉴定

生物信息学预测显示,转录活性最高的N1序列-72~-78区域存在核因子-κB(NF-κB)、p53和信号转导与转录激活因子3(STAT3)等转录因子结合位点(图6-a)。对N1序列中转录因子结合位点进行点突变后,构建突变菌pPG-DTBN1-Luciferase/27-2(图6-b)。利用Luciferase报告基因检测系统测定突变菌pPG-DTBN1-Luciferase/27-2中Luciferase报告基因的酶活性强弱,结果如图6-c所示。与未突变菌pPG-N1-Luciferase/27-2相比,突变菌pPG-DTBN1-Luciferase/27-2的Luciferase活性显著降低(P<0.05),表明在此区域内存在相对保守的启动子核心功能区域。
图6 高效表达效率调控元件核心功能区域的鉴定

a:转录因子结合位点预测;b:pPG-DTBN1-Luciferase质粒的PCR鉴定结果;突变菌pPG-DTBN1-Luciferase/27-2质粒PCR鉴定结果;c:Luciferase活性检测结果。M:蛋白分子量标准Marker;Con:阴性对照。**:显著极差异(P<0.01);ns:无显著差异(P>0.05)。

Fig.6 Identification of core functional areas of high-efficiency expression efficiency control components

a: prediction of transcription factor binding sites; b: PCR identification results of the pPG-DTBN1-Luciferase plasmid; PCR identification results of the mutant bacteria pPG-DTBN1-Luciferase/27-2 plasmid; c: results of Luciferase activity detection. M: protein molecular weight standard Marker; Con: negative control. **: extremely significant difference (P<0.01); ns: no significant difference (P>0.05).

3 讨论

在畜牧业生产中,长期使用抗生素易导致病原菌产生耐药性,且药物残留问题也对食品安全构成威胁。乳酸菌作为公认安全的食品级微生物,多数菌株具有益生特性[17],其耐酸耐胆盐的生物特性使其能在肠道中定植,对于肠道疾病的预防和治疗具有重要意义[18-20]。因此,乳酸菌作为活菌载体不仅能规避病原菌耐药性风险,还可彻底消除药物残留隐患,是极具潜力的抗生素替代物。当前乳酸菌表达系统存在表达效率偏低的问题,筛选高效分泌位点成为解决这一问题的关键。相较于存在质粒易丢失问题的质粒表达系统,基因组表达系统具有良好的遗传稳定性,既能长期稳定表达外源蛋白,又能通过细胞内调控机制实现更合理的表达水平,且外源蛋白折叠和组装更接近天然状态,生物活性更好。Li等[11]利用CRISPR/Cas9D10A系统构建了表达猪轮状病毒(PoRV)VP4的重组营养缺陷型乳酸菌,口服免疫小鼠后可显著诱导针对猪轮状病毒的抗体。但其整合位点选择主要基于功能基因区域,并未系统比较不同位点的表达驱动效率。因此,本研究通过LC-MS/MS技术筛选猪源L.paracasei 27-2基因组中分泌型蛋白的高效表达位点,并通过质粒表达系统筛选验证,为后续使用CRISPR-Cas9技术在此位点进行外源基因的精确插入提供了坚实的理论和数据支撑。与以往基于已知强启动子直接构建表达系统不同[14-15],本研究以宿主自身高表达分泌蛋白为基础,通过LC-MS/MS技术反向筛选调控元件,避免了异源启动子在不同菌株中适配性不足的问题,以提高表达系统的宿主特异性和稳定性。
LC-MS/MS技术以其高灵敏度、高分辨率及高通量分析优势,广泛应用于蛋白鉴定[21]、定量分析[22]、蛋白翻译后修饰分析[23]、相互作用研究[24]以及生物标记物[25]的发现等前沿领域。本研究选取具有肠道定植优势及免疫调节活性的猪源L.paracasei 27-2[26],基于LC-MS/MS蛋白质组学数据对L.paracasei 27-2分泌蛋白表达水平进行系统筛选,从蛋白表达丰度反向筛选高效表达调控元件,实现了筛选策略上的创新。结果显示,筛选获得的高效分泌蛋白前3位分别为:参与细胞膜形态维持及跨膜转运的TolA家族蛋白[27],介导乳酸菌营养摄取与黏附功能的细胞外溶质结合蛋白家族5[28],以及维持细胞壁完整性相关的肽聚糖水解酶[29],将上述蛋白的调控序列分别命名为N1、N2、N3。
目前检测调控元件最常见的方法是报告基因检测法,Luciferase报告基因系统具有灵敏度高、检测速度快的特点,常被应用于比较筛选性试验。Barakat等[30]建立了Luciferase介导的检测方法,用于探究转基因本氏烟草中病原相关分子模式(pathogen-associated molecular pattern,PAMP)触发的基因表达情况。本研究以大肠杆菌-乳酸菌穿梭载体pPG为骨架,构建含不同调控元件(N1、N2、N3)的Luciferase报告基因表达载体,转化宿主菌L.paracasei 27-2进行体外功能验证。Western blot、间接免疫荧光等结果显示,重组菌pPG-N1-Luciferase/27-2、pPG-N2-Luciferase/27-2、pPG-N3-Luciferase/27-2均能表达外源蛋白;利用Luciferase报告基因系统、qPCR进一步分析调控元件驱动外源蛋白表达的效率,与LC-MS/MS筛选结果一致,结果显示N1的转录水平、蛋白表达量及酶活性均高于N2、N3。
N1调控元件对应表达量最高的TolA家族蛋白,推测其启动子区域可能含有更完整的-10区(TATAAT)和-35区(TTGACA)保守序列,且核糖体结合位点与起始密码子的间距(通常为6~8 bp)更符合L.paracasei 27-2的翻译起始偏好,从而显著提升RNA聚合酶的结合效率与转录起始效率[31-32]。为确定N1调控序列中核心转录区域,借助生物信息学软件预测其转录因子结合位点,该区域可能存在与转录调控相关的保守序列元件,具体结合蛋白及调控机制仍有待进一步研究。对此区域进行点突变验证试验,证实该区域序列改变导致Luciferase蛋白表达能力下降,从而明确此区域为N1调控序列的核心转录功能区,其结构完整性对维持基因正常转录具有关键作用。本研究为后续在N1位点利用CRISPR-Cas9技术插入外源基因奠定了基础。鉴于N1位点调控的TolA家族蛋白具有跨膜转运功能,为避免外源基因插入干扰其正常表达,设计在表达盒两侧添加绝缘子调控元件[33],以保障宿主菌固有功能与外源蛋白稳定表达的兼容性。
本研究虽明确了N1调控元件的高效性与核心功能区域,但仍存在一定局限性:仅验证了Luciferase报告基因的表达效率,尚未验证功能性外源蛋白的表达效果。未来可利用N1调控元件构建表达免疫增强肽、植酸酶等功能性蛋白的重组益生菌,开发针对性的猪用微生态制剂;开展动物体内试验,验证重组乳酸菌在猪肠道内的定植能力及其对猪生长性能、肠道菌群及免疫力的影响。

4 结论

① 本研究利用LC-MS/MS技术筛选猪源L.paracasei 27-2基因组中高效表达调控元件:参与细胞膜形态维持及跨膜转运的TolA家族蛋白(N1),介导乳酸菌营养摄取与黏附功能的细胞外溶质结合蛋白家族5(N2),以及维持细胞壁完整性相关的肽聚糖水解酶(N3)。
② 本研究从分子活性、转录水平、蛋白表达3个层面完成Luciferase报告基因体外验证前3位调控元件活性强弱为N1>N2>N3,进一步通过点突变验证N1调控序列的核心转录功能区。
[1]
AKPOGHELIE P O, EDO G I, MAFE A N, et al.Food, health,and environmental impact of lactic acid bacteria:the superbacteria for posterity[J]. Probiotics and Antimicrobial Proteins, 2025, 17(5):2819-2855.

DOI

[2]
WU J Y, ZHANG Y H, YE L, et al. The anti-cancer effects and mechanisms of lactic acid bacteria exopolysaccharides in vitro:a review[J]. Carbohydrate Polymers, 2021, 253:117308.

DOI

[3]
DE FILIPPIS F, PASOLLI E, ERCOLINI D. The food-gut axis:lactic acid bacteria and their link to food,the gut microbiome and human health[J]. FEMS Microbiology Reviews, 2020, 44(4):454-489.

DOI

[4]
SHAH A B, BAISEITOVA A, ZAHOOR M, et al. Probiotic significance of Lactobacillus strains:a comprehensive review on health impacts,research gaps,and future prospects[J]. Gut Microbes, 2024, 16(1):2431643.

DOI

[5]
王一帆, 薛云德, 张宝平, 等. 副干酪乳杆菌的益生特性及其机制研究进展[J]. 食品研究与开发, 2024, 45(6):211-217.

WANG Y F, XUE Y D, ZHANG B P, et al. Research progress on probiotic properties and mechanism of Lactobacillus paracasei[J]. Food Research and Development, 2024, 45(6):211-217. (in Chinese)

[6]
MORADI M, KOUSHEH S A, ALMASI H, et al. Postbiotics produced by lactic acid bacteria:the next frontier in food safety[J]. Comprehensive Reviews in Food Science and Food Safety, 2020, 19(6):3390-3415.

DOI

[7]
LIU Y H, LIU G, FANG J. Progress on the mechanisms of Lactobacillus plantarum to improve intestinal barrier function in ulcerative colitis[J]. The Journal of Nutritional Biochemistry, 2024, 124:109505.

DOI

[8]
张绍时, 赵建, 郭豫, 等. 副干酪乳酪杆菌LPB27对肠道菌群的潜在调节作用[J]. 食品工业科技, 2026, 47(10):404-411.

ZHANG S S, ZHAO J, GUO Y, et al. Potential modulation of Lacticaseibacillus paracasei LPB27 on the gut flora[J]. Science and Technology of Food Industry, 2026, 47(10):404-411. (in Chinese)

[9]
李嘉楠, 高冉, 袁保壹, 等. 副干酪乳酪杆菌的益生特性及其在食品中的应用进展[J]. 食品工业, 2025, 46(12):190-197.

LI J N, GAO R, YUAN B Y, et al. Probiotic and fermentation properties of Lacticaseibacillus paracasei and its emerging applications in food systems[J]. The Food Industry, 2025, 46(12):190-197. (in Chinese)

[10]
LAO J L, CHEN M, YAN S P, et al. Lacticaseibacillus rhamnosus G7 alleviates DSS-induced ulcerative colitis by regulating the intestinal microbiota[J]. BMC Microbiology, 2025, 25(1):168.

DOI

[11]
LI F S, MEI Z Y, JU N, et al. Evaluation of the immunogenicity of auxotrophic Lactobacillus with CRISPR-Cas9D10A system-mediated chromosomal editing to express porcine rotavirus capsid protein VP4[J]. Virulence, 2022, 13(1):1315-1330.

DOI

[12]
高莹, 李淼, 孙元, 等. 乳酸乳球菌表达系统的发展现状与前景展望[J]. 微生物学报, 2022, 62(3):895-905.

GAO Y, LI M, SUN Y, et al. Development and prospects of Lactococcus lactis expression system[J]. Acta Microbiologica Sinica, 2022, 62(3):895-905. (in Chinese)

[13]
STABNIKOV V, KOVSHAR I, STABNIKOVA O. Recent advances in the study of the properties and applications of lactic acid bacteria[J]. World Journal of Microbiology and Biotechnology, 2025, 41(8):287.

DOI

[14]
袁世豪, 张海琳, 鞠宁, 等. 不同组成型启动子对乳酸菌表达系统外源基因表达影响的比较[J]. 中国畜牧兽医, 2023, 50(11):4370-4380.

DOI

YUAN S H, ZHANG H L, JU N, et al. Comparison of the effect of different constitutive promoters on exogenous gene expression in Lactobacillus expression system[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(11):4370-4380. (in Chinese)

[15]
刘芯孜, 赵海渊, 鞠宁, 等. 组成型启动子Pldh对乳酸菌表达系统外源基因表达的影响研究[J]. 畜牧兽医学报, 2025, 56(6):2937-2947.

DOI

LIU X Z, ZHAO H Y, JU N, et al. Effect of constitutive promoter Pldh on exogenous gene expression in lactic acid bacteria expression system[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(6):2937-2947. (in Chinese)

[16]
SCHNEIDER C A, RASBAND W S, ELICEIRI K W. NIH image to ImageJ:25 years of image analysis[J]. Nature Methods, 2012, 9(7):671-675.

DOI

[17]
TAVARES L M, DE JESUS L C L, DA SILVA T F, et al. Novel strategies for efficient production and delivery of live biotherapeutics and biotechnological uses of Lactococcus lactis:the lactic acid bacterium model[J]. Frontiers in Bioengineering and Biotechnology, 2020, 8:517166.

DOI

[18]
XIE W C, WANG X Y, CAI J Y, et al. Optimum fermentation conditions for bovine lactoferricin-lactoferrampin-encoding Limosilactobacillus reuteri and regulation of intestinal inflammation[J]. Foods, 2023, 12(22):4068.

DOI

[19]
ANJANA, TIWARI S K. Bacteriocin-Producing probiotic lactic acid bacteria in controlling dysbiosis of the gut microbiota[J]. Frontiers in Cellular and Infection Microbiology, 2022, 12:851140.

DOI

[20]
DING G J, BAI J, FENG B H, et al. An EGFP-marked recombinant Lactobacillus oral tetravalent vaccine constitutively expressing α,ε,β1,and β2 toxoids for Clostridium perfringens elicits effective anti-toxins protective immunity[J]. Virulence, 2019, 10(1):754-767.

DOI

[21]
AEBERSOLD R, MANN M. Mass spectrometry-based proteomics[J]. Nature, 2003, 422(6928):198-207.

DOI

[22]
GU H B, REN J M, JIA X Y, et al. Quantitative profiling of post-translational modifications by immunoaffinity enrichment and LC-MS/MS in cancer serum without immunodepletion[J]. Molecular & Cellular Proteomics, 2016, 15(2):692-702.

DOI

[23]
DUONG V A, NAM O, JIN E, et al. Discovery of post-translational modifications in Emiliania huxleyi[J]. Molecules, 2021, 26(7):2027.

DOI

[24]
JUNIOR S M, LEVANDER F. Automated multiplexed affinity-based enrichment of peptides for LC-MS/MS plasma proteomics[J]. Proteomics, 2024, 24(21/22):e2400049.

[25]
RAMAZI S, ZAHIRI J. Posttranslational modifications in proteins:resources,tools and prediction methods[J]. Database, 2021,2021:baab012.

[26]
马茹梦, 赵玉梁, 马明爽, 等. 不同猪源受体菌表达猪流行性腹泻病毒保护性抗原S1诱导免疫应答的比较研究[J]. 畜牧兽医学报, 2024, 55(5):2090-2099.

DOI

MA R M, ZHAO Y L, MA M S, et al. Comparative study on the immune response induced by the different porcine receptor bacteria with expressing the protective antigen S1 of porcine epidemic diarrhea virus[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(5):2090-2099. (in Chinese)

DOI

[27]
LI Q, LI Z, FEI X, et al. The role of TolA,TolB,and TolR in cell morphology,OMVs production,and virulence of Salmonella choleraesuis[J]. AMB Express, 2022, 12(1):5.

DOI

[28]
SONG M Y, KIM H, KWAK W, et al. Expression and purification of extracellular solute-binding protein (ESBP) in Escherichia coli,the extracellular protein derived from Bifidobacterium longum KACC 91563[J]. Food Science of Animal Resources, 2019, 39(4):601-609.

DOI

[29]
TÓTH M, MUZSAI S, REGULSKI K, et al. The phagocytosis of Lacticaseibacillus casei and its immunomodulatory properties on human monocyte-derived dendritic cells depend on the expression of Lc-p75,a bacterial peptidoglycan hydrolase[J]. International Journal of Molecular Sciences, 2022, 23(14):7620.

DOI

[30]
BARAKAT O, ZHANG F S, ZENG M Z, et al. Luciferase-mediated assay to detect the PAMP-triggered gene expression in transgenic Nicotiana benthamiana[J]. Plant Signaling & Behavior, 2024, 19(1):e2411918.

[31]
VOLKENBORN K, KUSCHMIERZ L, BENZ N, et al. The length of ribosomal binding site spacer sequence controls the production yield for intracellular and secreted proteins by Bacillus subtilis[J]. Microbial Cell Factories, 2020, 19(1):154.

DOI

[32]
CHEN H, BJERKNES M, KUMAR R, et al. Determination of the optimal aligned spacing between the Shine-Dalgarno sequence and the translation initiation codon of Escherichia coli mRNAs[J]. Nucleic Acids Research, 1994, 22(23):4953-4957.

DOI

[33]
ADANE M, ALAMNIE G. CRISPR/Cas9 mediated genome editing for crop improvement against abiotic stresses:current trends and prospects[J]. Functional & Integrative Genomics, 2024, 24(6):199.

文章导航

/