综述

5-氨基乙酰丙酸的生物学功能及其在畜禽生产中的应用

  • 李军辉 , 1 ,
  • 姜淑贞 1 ,
  • 王长波 2 ,
  • 杨维仁 , 1, *
展开
  • 1 山东农业大学动物科技学院,山东省动物生物工程与疾病防治重点实验室,泰安 271018
  • 2 山东深海生物科技股份有限公司,烟台 264000
* 杨维仁,教授,博士生导师,E-mail:

李军辉(1993—),男,山东高密人,硕士研究生,动物营养与饲料科学专业。E-mail:

收稿日期: 2022-06-15

  网络出版日期: 2023-01-11

基金资助

山东省生猪产业技术体系(SDAIT-08-04)

山东省重点研发计划(重大科技创新工程)项目——环境友好型猪禽无抗饲料和替抗养殖关键技术研究及应用(2019JZZY020609)

Biological Function of 5-Aminolevulinic Acid and Its Application in Livestock and Poultry Production

  • LI Junhui , 1 ,
  • JIANG Shuzhen 1 ,
  • WANG Changbo 2 ,
  • YANG Weiren , 1, *
Expand
  • 1 Shandong Provincial Key Laboratory of Animal Biotechnology and Disease Control and Prevention, College of Animal Science and Technology, Shandong Agricultural University, Tai’an 271018, China
  • 2 Shandong Shenhai Biotechnology Co., Ltd., Yantai 264000, China
* professor, E-mail:

Received date: 2022-06-15

  Online published: 2023-01-11

摘要

5-氨基乙酰丙酸(5-ALA)是机体内细胞代谢和能量转换过程中不可或缺的功能性化合物。5-ALA在动物体内参与血红素、卟啉、叶绿素和维生素B12等合成,具有良好的抗氧化、调控血红素和细胞色素合成以及改善机体体内铁含量等生物学功能。本文重点综述了5-ALA的生物学功能和相关代谢机制及其在畜禽养殖上的应用效果,以期为5-ALA在畜牧生产中的科学应用提供参考。

本文引用格式

李军辉 , 姜淑贞 , 王长波 , 杨维仁 . 5-氨基乙酰丙酸的生物学功能及其在畜禽生产中的应用[J]. 动物营养学报, 2023 , 35(1) : 120 -126 . DOI: 10.3969/j.issn.1006-267x.2023.01.013

Abstract

5-aminolevulinic acid (5-ALA) is an indispensable functional compound in cell metabolism and energy conversion. 5-ALA is involved in synthesizing heme, porphyrin, chlorophyll and vitamin B12 in animals, and has good biological functions such as antioxidant, regulation of the synthesis of heme and cytochrome, and improvement of iron content in the body. This review focused on the biological functions and metabolic mechanisms of 5-ALA and its application in livestock and poultry, to provide references for the scientific application of 5-ALA in livestock production.

5-氨基乙酰丙酸(5-aminolevulinic acid,5-ALA)是由琥珀酰辅酶A(succinyl coenzyme A,SCoA)和甘氨酸(glycine,Gly)缩合而成的非蛋白质氨基酸,是合成血红素、卟啉、叶绿素和维生素B12等四氢吡咯化合物的前体,普遍存在于动植物体内[1-2]。5-ALA在医学和农业领域应用较为广泛,在医学领域5-ALA常作为光敏剂的前体,用于光动力学的诊断和治疗[3-4];在农业领域5-ALA可被制作成具有生物降解作用的除草剂和杀虫剂,抑制杂草的生长及害虫的繁衍[5]。近年来,各国开始在畜牧生产中对抗生素的使用施行严格的管控制度,5-ALA作为一种新型畜禽饲料添加剂受到了广泛关注并在畜牧生产中取得了一定的效果。有研究表明,在7~17日龄的肉鸡饲粮中分别添加0.001%、0.01%、0.1%的5-ALA可以提高17日龄肉鸡脾脏中CD3 mRNA的表达量,降低白细胞介素-2(interleukin-2,IL-2)mRNA的表达量[6]。Pedrosa-Gerasmio等[7]研究发现,饲料中添加60 mg/kg 5-ALA饲喂幼体凡纳滨对虾12周后,可以显著提高对虾肝胰腺中与免疫相关的过氧化氢酶(catalase,CAT)和酚氧化酶原(prophenoloxidase,proPO)基因表达量;在高剂量副溶血弧菌浸泡试验中,发现60 mg/kg 5-ALA可以显著提高对虾成活率,这表明5-ALA不仅可以提高动物的免疫力,而且在抗菌方面也具有重要的作用。此外,5-ALA还可以提高畜禽的血红蛋白(hemoglobin,HGB)浓度、红细胞(red blood cell,RBC)数量,改善动物体内铁含量[8-10]。因此,5-ALA在畜牧生产中发展潜力巨大,具有很好的应用前景。本文重点综述了5-ALA的生物学功能、代谢机制及其在畜禽生产上的应用效果,以期为5-ALA在畜牧生产中的科学应用提供参考。

1 5-ALA的概述

1.1 5-ALA的理化特性

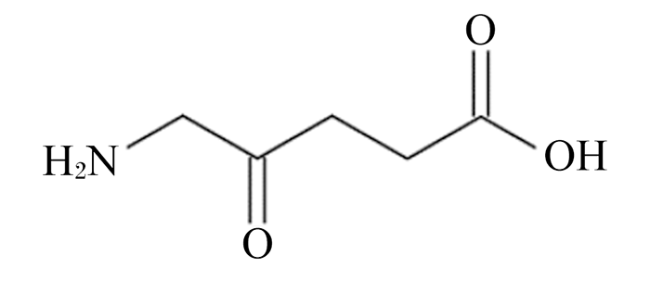
5-ALA又称作δ-氨基戊酮酸,它是一种纯天然的非蛋白质δ-氨基酸,为白色固体,pH在2.0~2.5之间,相对分子质量为131.13,弱酸的电离常数的负对数(pKa)=4.05,弱碱的电离常数的负对数(pKb)=8.9,溶于水和乙醇,在水中的溶解度为50 mg/mL,分子结构式为C5NO3H9(图1)[11]
图1 5-ALA的分子结构式

Fig.1 Molecular structure of 5-ALA

1.2 5-ALA的合成代谢

5-ALA是植物和动物机体内维持正常生命活动必要的活性物质。在植物中,主要参与光合作用和呼吸作用[12];在动物中,因为血红素和维生素B12在动物体内的能量和物质代谢中具有重要的作用,所以外源补充5-ALA可促进机体新陈代谢,进而提高机体活力和免疫力。
5-ALA在体内生成的方式有2种:第1种普遍存在于动物、酵母和真菌等线粒体中,在氨基乙酰丙酸合成酶(aminolevulinic acid synthetase,ALAS)的催化下,通过SCoA外加辅因子磷酸吡哆醛(pyridoxal phosphate,PLP)和Gly缩合,经过系列反应生成5-ALA,5-ALA生成后被运输到细胞质中进行下一步代谢反应[11]。第2种是C5途径,以谷氨酸盐或α-酮谷氨酸盐为完整的碳架,经过3个酶促反应得到5-ALA,该过程中谷氨酰-tRNA合成酶(glutamyl-tRNA synthetase,GLTX)是关键酶,此反应主要发生在高等植物的基质或是绿藻中[13]

2 5-ALA在动物体内的生物学功能

2.1 5-ALA参与血红素的形成

血红素是机体内许多生化反应中不可或缺的物质,例如氧气的运输和储存、电子转移以及血红素蛋白结构的组成。5-ALA是血红素合成途径中的重要中间体,它的合成会影响血红素的生成,而血红素的生物合成对动物体氧化代谢和细胞生长至关重要[14]。血红素生物合成源于5-ALA合成,ALAS在线粒体中诱导催化SCoA和Gly缩合生成5-ALA,2分子5-ALA在细胞质中经氨基乙酰丙酸脱水酶(aminolevulinate dehydratase,ALAD)作用合成胆色素原(porphobilinogen,PBG)[15],随后4分子PBG在尿卟啉原Ⅲ合酶(uroporphyrinogen Ⅲ synthase,UROS)催化下排列形成线性羟甲基胆烷(hydroxymethyl cholane,HMB),此时尿卟啉原Ⅲ(uroporphyrinogen Ⅲ,UROⅢ)的侧链被修饰,HMB被尿卟啉原脱羧酶(uroporphyrinogen decarboxylase,UROD)代谢成粪卟啉原Ⅲ(coproporphyrinogen Ⅲ,CPGⅢ),CPGⅢ被转运至线粒体中经粪卟啉原氧化酶(coproporphyrinogen oxidase,CPOX)脱羧形成无色产物原卟啉原Ⅸ(protoporphyrinogen Ⅸ,protogen Ⅸ),然后在原卟啉原氧化酶(protoporphyrinogen oxidase,PPOX)催化下合成原卟啉Ⅸ(protoporphyrin Ⅸ,PpⅨ),最终亚铁插入到PpⅨ中,在亚铁螯合酶(ferrochelatase,FECH)催化下合成血红素[16]。5-ALA含量在该过程中可随着机体内部微环境的变化而改变,但最终受血红素的负反馈调控。目前,虽然对于血红素合成途径上的酶已经进行了深入的研究,但血红素合成途径的调控机制仍然是一个很复杂的过程。Kwon等[17]以光合细菌荚膜红细菌(Rhodobacter capsulatus,R.capsulatus)为载体过表达hem A基因来提高5-ALA的合成,从而促进血红素的产生,结果表明5-ALA与血红素产量呈显著性正相关,同时hem Bhem H基因的下调也影响着5-ALA和血红素的合成。Zhang等[18]为了研究血红素合成途径下游基因对5-ALA合成的影响,在大肠杆菌中分别用低拷贝数载体pCDFDuet-1过表达hem Bhem Chem Dhem Ehem Fhem Ghem H基因,发现hem Dhem F基因的上调可以促进5-ALA的合成,这表明下游基因hem Dhem F基因的上调与5-ALA积累呈正相关,同时也表明hem Dhem F基因是血红素生物合成途径的重要调控因子。因此,血红素的合成是一个复杂的过程,5-ALA在其中具有不可替代的作用。

2.2 5-ALA提高细胞色素P450(cytochrome P450,CYP)活性

CYP属于血红蛋白家族,它主要分布在线粒体内膜和细胞内质网上,是一种血红素单加氧酶,在体内广泛的参与药物、类固醇及脂溶性维生素等物质的代谢反应[19]。CYP的主要合成场所是肝脏,大约有超过50%的血红素被用以合成CYP,血红素作为CYP的辅基在药物代谢过程中调控一些酶的催化活性,此外游离血红素也参与调节CYP蛋白的合成、组装、修复和清除[20]。5-ALA提高CYP的活性可能与血红素的合成有关,在5-ALA存在的条件下,HGB可能在细胞中被特异性激活,与CYP类似的血红蛋白酶的活动则需要以血红素为辅基[21],当细胞中5-ALA含量增加时会促进血红素的生物合成,从而通过特定反应影响血红素蛋白的表达和活性。研究表明,在1.0 mmol/L 5-ALA和0.5 mmol/L柠檬酸亚铁钠(sodium ferrous citrate,SFC)处理下MKN28细胞中的CYP2A6基因被诱导表达,同时显著增加了细胞内血红素含量,其机制可能是5-ALA和SFC通过增加apo-CYP及血红素含量来提高CYP活性[22]。此外,Chen等[23]研究表明,1~42日龄肉鸡饲粮中添加15、30、45和60 mg/kg 5-ALA可显著提高42日龄肉鸡肝脏CYP1A1 mRNA的表达,这说明5-ALA可能从基因调控方面影响CYP活性。但关于5-ALA提高CYP活性的研究较少,其机制还需进一步深入探究。

2.3 5-ALA的抗炎及免疫调节作用

5-ALA在提高动物免疫机能、抗炎和抗氧化方面具有重要的作用。5-ALA参与治疗机体的炎症及一些自身免疫疾病,这是由于5-ALA可以上调血红素氧合酶-1(heme oxygenase-1,HO-1)基因的结果,HO-1也被证明是消除细胞氧化损伤和减少机体炎症的重要细胞保护因子[15]。Nishio等[24]研究发现,5-ALA可以促进巨噬细胞(RAW 264细胞)合成血红素,从而导致Bach1失活,激活丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)并诱导HO-1基因的表达,但其具体机制尚不清楚。HO-1是一种诱导型酶,可催化血红素氧化降解为一氧化碳(CO)、胆绿素和游离铁,该过程触发了一系列旨在恢复细胞结构和功能的细胞活动[25]。这些血红素代谢物具有抗凋亡、抗炎和免疫调节的功能,其中CO具有介导抗炎的作用,在低浓度条件下CO可以抑制脂多糖诱导的肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、白细胞介素-1β(interleukin-1β,IL-1β)等促炎细胞因子的表达[26];Nakao等[27]在用CO和胆绿素联合治疗缺血再灌注损伤时,发现外渗的炎症浸润物和促炎介质的上调显著降低;二价铁离子(Fe2+)本身不具有抗炎作用,但其诱导的铁蛋白重链可使内皮细胞免受因多种刺激引起的凋亡[28]。Hendawy等[29]研究表明,用添加10 mg/kg 5-ALA的全混合日粮(TMR)饲喂高产奶牛2 d可以显著增加奶牛血液中白细胞(white blood cell,WBC)、中性粒细胞和嗜碱性粒细胞的数量,认为5-ALA具有免疫调节作用。Pedrosa-Gerasmio等[30]用添加15 mg/kg 5-ALA的饲料饲喂太平洋白虾2周后,发现5-ALA可以上调肝胰腺中部分与免疫和机体防御相关基因的表达。此外,另有研究表明,在21~42日龄用添加10 mg/kg 5-ALA的饲粮饲喂断奶仔猪后,其42日龄血液中的CD2+、CD8+、B细胞、主要组织相容性复合体-Ⅰ(major histocompatibility complex-Ⅰ,MHC-Ⅰ)和主要组织相容性复合体-Ⅱ(major histocompatibility complex-Ⅱ,MHC-Ⅱ)含量与对照组(不添加5-ALA)相比显著提高[31]。通过以上研究表明,5-ALA可以作为畜禽饲料添加剂,在提高动物免疫力和抗炎作用上具有广阔的应用前景。

2.4 5-ALA改善体内的铁含量

铁在生命体中以Fe2+和三价铁离子(Fe3+)的形式存在,积极参与机体的DNA合成、酶的氧化还原、电子传递、线粒体呼吸、氧气运输等过程,它对维持动物正常细胞功能具有不可替代的作用。在前文中我们知道,5-ALA是SCoA和Gly的产物,经过一系列化学相互作用之后,5-ALA被转变成PpⅨ,在FECH催化下PpⅨ的卟啉环插入铁原子,该过程可能是促进铁在动物体内的吸收、改善机体内铁状态的重要原因之一。在动物上RBC数量、血清铁含量及HGB浓度等指标都可以反映动物的铁状态。有研究表明,用添加3 mg/kg 5-ALA的饲粮饲喂21日龄断奶仔猪35 d后,可显著增加断奶仔猪的RBC数量、血清铁含量,认为可能与5-ALA有提高铁吸收的特性有关[32]。Wang等[33]研究发现,蛋鸡在饲用添加10 mg/kg 5-ALA的饲粮6周后,HGB浓度显著提高。先前研究多集中在猪和鸡上,然而最近一项研究表明,添加10 mg/kg 5-ALA的TMR饲喂高产奶牛2 d后,对奶牛血液RBC数量、HGB浓度以及血清和牛奶中铁含量无显著影响,该研究认为造成与前人结果差异性的原因可能与反刍动物和单胃动物之间的消化吸收方式及参与消化的微生物相关[29]。虽然有的研究表明5-ALA可能对机体铁含量无影响,但大部分研究结果依旧认为5-ALA对改善畜禽体内的铁含量具有积极的影响。

3 5-ALA在畜禽生产中的应用

3.1 5-ALA在猪生产中的应用

根据以往研究表明,5-ALA在猪上的应用较多。Min等[34]研究发现,在对断奶仔猪饲喂5-ALA的20 d试验中,抗生素联合0.2% 5-ALA组和0.2% 5-ALA组的仔猪血液HGB浓度和红细胞压积(hematocrit,HCT)均显著高于基础饲粮组或抗生素组,而血液RBC和WBC数量仅显著高于基础饲粮组,另外添加0.1% 5-ALA、0.2% 5-ALA及抗生素联合0.2% 5-ALA还可以显著增加淋巴细胞数量。Wang等[35]研究发现,在妊娠期和泌乳期母猪饲粮中添加90 mg/kg 5-ALA,可以显著提高泌乳母猪第21天血液HGB浓度以及血液和乳汁中铁含量;对于仔猪而言,与添加90 mg/kg硫酸亚铁(FeSO4)相比,饲粮添加90 mg/kg 5-ALA可以显著提高仔猪第21天血液HGB浓度、HCT及铁含量。Chen等[36]研究表明,断奶仔猪在饲用5-ALA(5、10和15 mg/kg)后随着5-ALA浓度的增加断奶仔猪第21天血液HGB浓度有升高的趋势,对断奶仔猪第35天的血清铁含量也有显著提高的作用,且都以10 mg/kg 5-ALA组影响最大。免疫球蛋白G(IgG)是机体血清中免疫球蛋白的主要成分,在体内具有免疫调节的作用。Yan等[32]用5-ALA(0和3 mg/kg)和壳寡糖(0和3 mg/kg)饲喂断奶仔猪35 d,发现单独使用5-ALA对血清IgG含量无影响,但是5-ALA和壳寡糖联合使用具有协同作用,可显著提高血清IgG含量。李敏[37]研究发现,在母猪妊娠后期添加25和50 mg/kg 5-ALA可以显著提高新生仔猪血清IgG和铁含量,从而对改善仔猪体内免疫状况具有积极影响。Wang等[10]研究表明,泌乳母猪饲粮中添加10 mg/kg 5-ALA组在仔猪断奶时母猪血液RBC数量显著升高,同时21日龄断奶猪血液HGB浓度和铁含量也显著升高。其他研究表明,通过向断奶仔猪饲喂添加5-ALA(500和1 000 mg/kg)饲粮33 d后,不仅可显著提高断奶仔猪第33天RBC数量、HGB浓度及HCT,而且还可以显著提高断奶仔猪1~33 d全程的平均日增重及显著降低全程的料重比[38]。因此,在猪饲粮中添加5-ALA可以影响猪只生产性能及血液生理等指标,改善猪机体免疫状态及铁贮含量,并能作为一种功能性饲料添加剂在猪生产中应用。

3.2 5-ALA在家禽生产中的应用

Sato等[6]研究发现,与对照组相比,饲粮添加0.001% 5-ALA后,肉鸡第21天及第50天的体重显著提高。在肉鸡饲粮添加30 mg/kg 5-ALA可以显著提高肉鸡第21天的HGB浓度,同时添加60 mg/kg 5-ALA显著降低了肉鸡第1~21天和第22~42天2个阶段的料重比,而添加45和60 mg/kg 5-ALA也可显著提高肉鸡对蛋白质的利用率[23],从而表明5-ALA可以促进养分的利用,改善肉鸡的生产性能。Yan等[39]试验表明,在给蛋鸡饲用添加5-ALA(2和4 mg/kg)的饲粮8周后,蛋鸡血液RBC、WBC及淋巴细胞的数量呈二次显著增加,5-ALA可通过影响免疫细胞进而对机体免疫系统有积极作用。此外,还有研究表明,5-ALA有利于改善家禽体内的铁贮含量。Wang等[9]研究表明,1~35 d试验期内饲粮添加5和10 mg/kg 5-ALA,在试验结束时可显著提高肉鸡血清、肝脏及胸肌中铁含量,同时10 mg/kg 5-ALA与500 mg/kg维生素C搭配使用存在交互作用,可以显著提高肉鸡血液HGB浓度及肝脏和胸肌中铁含量。Chen等[40]研究发现,在对40周龄蛋鸡开展为期8周的试验中,饲粮添加5 mg/kg 5-ALA组的蛋鸡血清铁浓度呈二次显著增加,这可能是由于5-ALA促进铁的吸收造成的。综上可知,5-ALA在动物体内是不可或缺的活性物质,在家禽饲粮中添加5-ALA可以改善家禽的生产性能及血液指标,影响机体免疫系统,并对家禽体内的铁含量有积极作用。

4 小结与展望

5-ALA是动物机体维持正常代谢过程必不可少的生理活性物质。5-ALA在动物体内通过参与血红素的合成促进机体对铁离子的吸收,影响机体的免疫系统和血液代谢过程,进而在促进畜禽生长发育、提高免疫力以及改善动物体内铁含量等功能方面表现出较强的应用潜力。但是,目前5-ALA作为功能性饲料添加剂在畜禽生理上的具体作用机制尚不明确。未来可继续在畜禽方面开展大量的研究,重点解决以下问题:1)5-ALA在不同畜禽生产中的使用条件、适宜添加剂量和安全剂量尚不明确,需要进一步研究;2)5-ALA对畜禽免疫的影响多集中在对血液检测上,其是否可以通过影响肠道菌群平衡调控机体的免疫系统,需要进一步研究;3)5-ALA在畜禽上研究多集中在作用效果等表型方面,缺乏其对畜禽机体影响的具体分子机制,需要进一步研究。因此,系统深入研究5-ALA的生物学功能、作用机制及应用条件,对于实现畜禽高效健康养殖具有重要的作用。
[1]
KANG Z, WANG Y, GU P F, et al. Engineering Escherichia coli for efficient production of 5-aminolevulinic acid from glucose[J]. Metabolic Engineering, 2011, 13(5):492-498.

DOI

[2]
NOH M H, LIM H G, PARK S, et al. Precise flux redistribution to glyoxylate cycle for 5-aminolevulinic acid production in Escherichia coli[J]. Metabolic Engineering, 2017, 43(Pt A):1-8.

DOI

[3]
WATANABE T, NISHIO Y, YAMAMOTO Y, et al. Photodynamic therapy with 5-aminolevulinic acid:a new diagnostic,therapeutic,and surgical aid for neuroblastoma[J]. Journal of Pediatric Surgery, 2022, 57(7):1281-1285.

DOI

[4]
INOUE K. 5-aminolevulinic acid-mediated photodynamic therapy for bladder cancer[J]. International Journal of Urology, 2017, 24(2):97-101.

DOI PMID

[5]
王丽君, 闫思翰, 杨套伟, 等. 代谢改造重组谷氨酸棒杆菌C4途径高效合成5-氨基乙酰丙酸[J]. 生物工程学报, 2021, 37(12):4314-4328.

WANG L J, YAN S H, YANG T W, et al. Engineering the C4 pathway of Corynebacterium glutamicum for efficient production of 5-aminolevulinic acid[J]. Chinese Journal of Biotechnology, 2021, 37(12):4314-4328. (in Chinese)

[6]
SATO K, MATSUSHITA K, TAKAHASHI K, et al. Dietary supplementation with 5-aminolevulinic acid modulates growth performance and inflammatory responses in broiler chickens[J]. Poultry Science, 2012, 91(7):1582-1589.

DOI PMID

[7]
PEDROSA-GERASMIO I R, KONDO H, HIRONO I. Dietary 5-aminolevulinic acid enhances adenosine triphosphate production,ecdysis and immune response in Pacific white shrimp,Litopenaeus vannamei (Boone)[J]. Aquaculture Research, 2019, 50(4):1131-1141.

DOI

[8]
CHEN Y J, KIM I H, CHO J H, et al. Utilization of δ-aminolevulinic acid for livestock:blood characteristics and immune organ weight in broilers[J]. Journal of Animal and Feed Sciences, 2008, 17(2):215-223.

DOI

[9]
WANG J P, YAN L, LEE J H, et al. Effects of dietary delta-aminolevulinic acid and vitamin C on growth performance,immune organ weight and ferrum status in broiler chicks[J]. Livestock Science, 2011, 135(2/3):148-152.

DOI

[10]
WANG J P, KIM H J, CHEN Y J, et al. Effects of delta-aminolevulinic acid and vitamin C supplementation on feed intake,backfat,and iron status in sows[J]. Journal of Animal Science, 2009, 87(11):3589-3595.

DOI

[11]
FUKUDA H, CASAS A, BATLLE A. Aminolevulinic acid:from its unique biological function to its star role in photodynamic therapy[J]. The International Journal of Biochemistry & Cell Biology, 2005, 37(2):272-276.

DOI

[12]
胡云鹏. 绿色新型调节剂5-氨基乙酰丙酸对百合生长发育的影响[D]. 硕士学位论文. 广州: 仲恺农业工程学院, 2018.

HU Y P. Effect of a green regulator 5-aminolevulinic acid on the growth and development of Lilium[D]. Master’s Thesis. Guangzhou: Zhongkai University of Agriculture and Engineering, 2018. (in Chinese)

[13]
李智祥. 5-氨基乙酰丙酸生产菌的代谢工程构建[D]. 硕士学位论文. 天津: 天津科技大学, 2018.

LI Z X. Metabolic engineering construction of 5-amtnolevulinic acid producing strain[D]. Master’s Thesis.Tianjin:Tianjin University of Science and Technology, 2018. (in Chinese)

[14]
YI Y C, SHIH I T, YU T H, et al. Challenges and opportunities of bioprocessing 5-aminolevulinic acid using genetic and metabolic engineering:a critical review[J]. Bioresources and Bioprocessing, 2021, 8(1):100.

DOI

[15]
SANSALONI-PASTOR S, VARESIO E, LANGE N. Modulation and proteomic changes on the heme pathway following treatment with 5-aminolevulinic acid[J]. Journal of Photochemistry and Photobiology.B,Biology, 2022, 233:112484.

[16]
SHIMURA M, NOZAWA N, OGAWA-TOMINAGA M, et al. Effects of 5-aminolevulinic acid and sodium ferrous citrate on fibroblasts from individuals with mitochondrial diseases[J]. Scientific Reports, 2019, 9(1):10549.

DOI PMID

[17]
KWON S J, DE BOER A L, PETRI R, et al. High-level production of porphyrins in metabolically engineered Escherichia coli:systematic extension of a pathway assembled from overexpressed genes involved in heme biosynthesis[J]. Applied and Environmental Microbiology, 2003, 69(8):4875-4883.

DOI

[18]
ZHANG J L, KANG Z, CHEN J, et al. Optimization of the heme biosynthesis pathway for the production of 5-aminolevulinic acid in Escherichia coli[J]. Scientific Reports, 2015, 5(1):8584.

DOI

[19]
GUENGERICH F P, WATERMAN M R, EGLI M. Recent structural insights into cytochrome P450 function[J]. Trends in Pharmacological Sciences, 2016, 37(8):625-640.

DOI PMID

[20]
CORREIA M A, SINCLAIR P R, DE MATTEIS F. Cytochrome P450 regulation:the interplay between its heme and apoprotein moieties in synthesis,assembly,repair,and disposal[J]. Drug Metabolism Reviews, 2011, 43(1):1-26.

[21]
WERCK-REICHHART D, FEYEREISEN R. Cytochromes P450:a success story[J]. Genome Biology, 2000, 1(6):reviews3003.1.

[22]
MIURA M, ITO K, HAYASHI M, et al. The effect of 5-aminolevulinic acid on cytochrome P450-mediated prodrug activation[J]. PLoS One, 2015, 10(7):e0131793.

DOI

[23]
CHEN J, CHEN Z M, WANG Z D, et al. Dietary 5-aminolevulinic acid supplementation improves growth performance,nutrient utilisation,iron status and antioxidant capacity of broilers[J]. Italian Journal of Animal Science, 2022, 21(1):445-454.

DOI

[24]
NISHIO Y, FUJINO M, ZHAO M Y, et al. 5-aminolevulinic acid combined with ferrous iron enhances the expression of heme oxygenase-1[J]. International Immunopharmacology, 2014, 19(2):300-307.

DOI PMID

[25]
SUGIYAMA Y, HIRAIWA Y, HAGIYA Y, et al. 5-aminolevulinic acid regulates the immune response in LPS-stimulated RAW 264.7 macrophages[J]. BMC Immunology, 2018, 19(1):41.

DOI PMID

[26]
OTTERBEIN L E, BACH F H, ALAM J, et al. Carbon monoxide has anti-inflammatory effects involving the mitogen-activated protein kinase pathway[J]. Nature Medicine, 2000, 6(4):422-428.

DOI PMID

[27]
NAKAO A, NETO J S, KANNO S, et al. Protection against ischemia/reperfusion injury in cardiac and renal transplantation with carbon monoxide,biliverdin and both[J]. American Journal of Transplantation, 2005, 5(2):282-291.

DOI

[28]
BERBERAT P O, KATORI M, KACZMAREK E, et al. Heavy chain ferritin acts as an antiapoptotic gene that protects livers from ischemia reperfusion injury[J]. FASEB Journal, 2003, 17(12):1724-1726.

PMID

[29]
HENDAWY A O, SHIRAI M, TAKEYA H, et al. Effects of 5-aminolevulinic acid supplementation on milk production,iron status,and immune response of dairy cows[J]. Journal of Dairy Science, 2019, 102(12):11009-11015.

DOI

[30]
PEDROSA-GERASMIO I R, TANAKA T, SUMI A, et al. Effects of 5-aminolevulinic acid on gene expression,immunity,and ATP levels in pacific white shrimp,Litopenaeus vannamei[J]. Marine Biotechnology, 2018, 20(6):829-843.

DOI

[31]
WANG J P, JUNG J H, KIM I H. Effects of dietary supplementation with delta-aminolevulinic acid on growth performance,hematological status,and immune responses of weanling pigs[J]. Livestock Science, 2011, 140(1/2/3):131-135.

DOI

[32]
YAN L, KIM I H. Evaluation of dietary supplementation of delta-aminolevulinic acid and chitooligosaccharide on growth performance,nutrient digestibility,blood characteristics,and fecal microbial shedding in weaned pigs[J]. Animal Feed Science and Technology, 2011, 169(3/4):275-280.

DOI

[33]
WANG J P, LEE J H, JANG H D, et al. Effects of δ-aminolevulinic acid and vitamin C supplementation on iron status,production performance,blood characteristics and egg quality of laying hens[J]. Journal of Animal Physiology and Animal Nutrition, 2011, 95(4):417-423.

DOI

[34]
MIN B J, HONG J W, KWON O S, et al. Influence of dietary δ-aminolevulinic acid supplement on growth performance and hematological changes in weaned pigs[J]. Journal of the Korean Society of Food Science and Nutrition, 2004, 33(10):1606-1610.

DOI

[35]
WANG J P, KIM I H. Effects of iron injection at birth on neonatal iron status in young pigs from first-parity sows fed delta-aminolevulinic acid[J]. Animal Feed Science and Technology, 2012, 178(3/4):151-157.

DOI

[36]
CHEN Y J, KIM I H, CHO J H, et al. Effect of δ-aminolevulinic acid on growth performance,nutrient digestibility,blood parameters and the immune response of weanling pigs challenged with Escherichia coli lipopolysaccharide[J]. Livestock Science, 2008, 114(1):108-116.

DOI

[37]
李敏. 氨基乙酰丙酸对母猪和仔猪机体铁状态的影响[D]. 硕士学位论文. 泰安: 山东农业大学, 2020.

LI M. Effects of aminolevulinic acid on iron status of sows and piglets[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2020. (in Chinese)

[38]
HOSSAIN M M, PARK J W, KIM I H. δ-Aminolevulinic acid,and lactulose supplements in weaned piglets diet:effects on performance,fecal microbiota,and in-vitro noxious gas emissions[J]. Livestock Science, 2016, 183:84-91.

DOI

[39]
YAN L, LEE J H, MENG Q W, et al. Evaluation of dietary supplementation of delta-aminolevulinic acid and chito-oligosaccharide on production performance,egg quality and hematological characteristics in laying hens[J]. Asian-Australasian Journal of Animal Sciences, 2010, 23(8):1028-1033.

DOI

[40]
CHEN Y J, CHO J H, YOO J S, et al. Evaluation of δ-aminolevulinic acid on serum iron status,blood characteristics,egg performance and quality in laying hens[J]. Asian-Australasian Journal of Animal Sciences, 2008, 21(9):1355-1360.

DOI

文章导航

/