研究论文

解淀粉芽孢杆菌对奶牛瘤胃干物质消化率、发酵参数及代谢物的影响

  • 李玉琴 ,
  • 黄新 ,
  • 高鹏翔 ,
  • 赵小博 ,
  • 王慧 , * ,
  • 蒋林树 , *
展开
  • 北京农学院动物科学技术学院,奶牛营养学北京市重点实验室,北京 102206
* 王 慧,讲师,E-mail: ;
蒋林树,教授,博士生导师,E-mail:

李玉琴(1994—),女,甘肃张掖人,硕士研究生,研究方向为反刍动物营养与免疫。E-mail:

收稿日期: 2022-06-30

  网络出版日期: 2023-01-11

基金资助

北京市教育委员会科技计划一般项目(KM202010020010)

2022分类发展定额项目(5066516004/003)

Effects of Bacillus amylolyticus on Rumen Dry Matter Digestibility, Fermentation Parameters and Metabolites of Dairy Cows

  • LI Yuqin ,
  • HUANG Xin ,
  • GAO Pengxiang ,
  • ZHAO Xiaobo ,
  • WANG Hui , * ,
  • JIANG Linshu , *
Expand
  • Beijing Key Laboratory of Dairy Nutrition, College of Animal Science and Technology, Beijing Agricultural University, Beijing 102206, China
* WANG Hui, lecturer, E-mail: ;
JIANG Linshu, professor, E-mail:

Received date: 2022-06-30

  Online published: 2023-01-11

摘要

本试验旨在研究解淀粉芽孢杆菌对奶牛瘤胃干物质消化率、发酵参数和代谢物的影响。试验1:选择6头胎次(2~3胎)、体重[(662±57) kg]、泌乳天数[(160±22) d]、产奶量[(36.1±3.8) kg/d]相近的安装永久性瘘管的奶牛,随机分为3组,每组2头。采用3×3拉丁方设计进行试验,每组分别补饲0(对照组)、5×109、5×1010 CFU/d解淀粉芽孢杆菌。试验期为3期,每期13 d,其中预试期10 d,正试期3 d,在正试期开始时用尼龙袋法测定奶牛瘤胃干物质消化率。试验2:选用30头胎次[(2.5±0.3)胎]、初始体重[(559.2±37.4) kg]、产奶量[(35.2±1.5) kg/d]、泌乳天数[(99±2)d]相近的奶牛,随机分为3组,每组10头。3组分别补饲0(对照组)、5×109、5×1010 CFU/d解淀粉芽孢杆菌,预试期10 d,正试期42 d。正试期最后1 d采集奶牛瘤胃液,测定奶牛瘤胃发酵参数以及代谢物。结果显示:与对照组相比,1)补饲5×10¹⁰ CFU/d解淀粉芽孢杆菌在12、24、36、48、72 h时均可显著提高奶牛瘤胃干物质消化率(P<0.05),补饲5×10⁹ CFU/d解淀粉芽孢杆菌在36和48 h时可显著提高奶牛瘤胃干物质消化率(P<0.05);2)补饲5×10⁹ CFU/d解淀粉芽孢杆菌可以显著提高奶牛瘤胃中异丁酸、丁酸、异戊酸、戊酸、总挥发性脂肪酸和微生物蛋白含量(P<0.05),补饲5×1010 CFU/d解淀粉芽孢杆菌可以显著提高奶牛瘤胃中异丁酸和异戊酸含量,显著降低乙酸/丙酸(P<0.05),补饲5×109、5×1010 CFU/d解淀粉芽孢杆菌对奶牛瘤胃pH、氨态氮含量没有显著影响(P>0.05);3)检测发现11个差异代谢物相关的代谢通路,富集差异显著的代谢通路为抗坏血酸和藻酸盐代谢(P<0.05)。综上所述,解淀粉芽孢杆菌可以通过影响瘤胃代谢物含量,改善瘤胃发酵功能,提高奶牛瘤胃干物质消化率。综合分析认为,奶牛补饲5×109 CFU/d解淀粉芽孢杆菌效果较佳。

本文引用格式

李玉琴 , 黄新 , 高鹏翔 , 赵小博 , 王慧 , 蒋林树 . 解淀粉芽孢杆菌对奶牛瘤胃干物质消化率、发酵参数及代谢物的影响[J]. 动物营养学报, 2023 , 35(1) : 311 -322 . DOI: 10.3969/j.issn.1006-267x.2023.01.032

Abstract

This experiment was conducted to study the effects of Bacillus amylolyticus on rumen dry matter digestibility, fermentation parameters and metabolites of dairy cows. Experiment 1: six dairy cows with permanent fistula and had the similar parity (2 to 3 fetuses), body weight [(662±57) kg], lactation days [(160±22) d] and milk yield [(36.1±3.8) kg/d], were randomly divided into 3 groups with 2 cows per group. Using 3×3 Latin square design, each group was extra fed 0 (control group), 5×10⁹ and 5×10¹⁰ CFU/d Bacillus amylolyticus, the trial period was 3 periods, 13 days for each period, including 10 days for the pre-trial period and 3 days for the trial period. At the beginning of the trial period, the rumen dry matter digestibility of cows was measured by nylon bag method. Experiment 2: thirty dairy cows with similar parity [(2.5±0.3) fetuses], initial body weight [(559.2±7.4) kg], milk yield [(35.2±1.5) kg/d] and lactation days [(99±22) d] were randomly divided into three groups with 10 cows in each group. Cows in the 3 groups were extra fed with 0 (control group), 5×10⁹ and 5×10¹⁰ CFU/d Bacillus amylolyticus, respectively. The pre-trial period was 10 days and the trial period was 42 days. The rumen fluid was collected on the last day of the trial period, and the rumen fermentation parameters and metabolites were determined. The results showed as follows: compared with the control group, 1) supplementary feeding of 5×10¹⁰ CFU/d Bacillus amylolyticus could significantly improve the rumen dry matter digestibility of dairy cows at 12, 24, 36, 48 and 72 h (P<0.05), supplementary feeding of 5×10⁹ CFU/d Bacillus amylolyticus could significantly improve the rumen dry matter digestibility of dairy cows at 36 and 48 h (P<0.05); 2) supplementary feeding of 5×10⁹ CFU/d Bacillus amylolyticus could significantly increase the contents of isobutyric acid, butyric acid, isovaleric acid, valeric acid, total volatile fatty acid and microbial protein in the rumen of dairy cows (P<0.05), supplementary feeding of 5×10¹⁰ CFU/d Bacillus amylolyticus could significantly increase the contents of isobutyric acid and isovaleric acid in the rumen of dairy cows and significantly reduce the rumen acetic acid/propionic acid (P<0.05), supplementary feeding of 5×10⁹ and 5×10¹⁰ Bacillus amylolyticus had no effects on rumen pH and ammonia nitrogen content (P>0.05); 3) eleven metabolic pathways related to differential metabolites were detected, and ascorbic acid and alginate metabolism were significantly enriched (P<0.05). In conclusion, Bacillus amylolyticus can increase the rumen dry matter digestibility, and improve the rumen fermentation function of dairy cows by affecting the content of rumen metabolites. By comprehensive analysis, supplementary feeding of 5×10⁹ CFU/d Bacillus amylolyticus can achieve better effect.

瘤胃是反刍动物特有的消化器官。饲粮中的干物质在瘤胃中被消化,合成微生物蛋白(MCP)和参与瘤胃发酵,为奶牛提供机体所需的氨基酸和挥发性脂肪酸(VFA),VFA被瘤胃壁吸收,是奶牛机体主要的能量来源[1]。因此,瘤胃干物质消化机能直接关系着奶牛的生理健康,也影响着正常的生产[2]。自禁抗以来,益生菌在动物生产中的使用大幅增加[3]。目前,益生菌已被认为是一种潜在的绿色饲料添加剂,在反刍动物中,益生菌主要是通过调控瘤胃发酵模式,提高饲料利用率,来提高动物生产性能,改善动物健康状况[4]
解淀粉芽孢杆菌是广泛存在于自然环境中的革兰氏阳性需氧细菌,能分泌多种抗菌物质,对各种致病性真菌、致病性弧菌等细菌的生长有很强的抑制作用[5]。作为一种多功能和潜在的益生菌,解淀粉芽孢杆菌可产生多种胞外酶,包括α-淀粉酶、纤维素酶、金属蛋白酶和蛋白酶,这些酶在动物肠道内定植,可增强肠道对营养物质的消化和吸收,而且对人畜无毒害,不污染环境,在动物生产上应用广泛[6]。研究表明,补饲5×10⁹ CFU/d解淀粉芽孢杆菌可以提高奶牛的乳蛋白率,增强机体的免疫能力和抗氧化能力[7];饲喂羔羊添加3%解淀粉芽孢杆菌的微生态制剂能够显著提高羔羊血清免疫力,通过改善羔羊胃肠道微生物菌群结构,显著防治羔羊腹泻[8];饲喂1×109 CFU/mL解淀粉芽孢杆菌增加了黑山羊瘤胃微生物的多样性和丰富度,通过改善瘤胃中有益微生物系统来减少瘤胃中致病细菌的数量,以促进黑山羊营养代谢,提高生长性能和免疫力[9];在畜禽饲粮中添加解淀粉芽孢杆菌还可以减少粪便中含氮物质和含磷物质等的排放,改善畜禽养殖环境[10-11]。以上结果表明,解淀粉芽孢杆菌可以作为一种饲料添加剂在反刍动物中应用。目前,解淀粉芽孢杆菌对奶牛瘤胃发酵的影响尚未见报道。因此,本研究拟通过研究解淀粉芽孢杆菌对奶牛瘤胃干物质消化率、发酵参数及代谢物的影响,为解淀粉芽孢杆菌在奶牛养殖业上的应用提供依据。

1 材料与方法

1.1 试验材料

试验所用解淀粉芽孢杆菌粉剂由某有限公司提供(储存方法:阴凉干燥处储存;保质期:24个月),该菌剂含解淀粉芽孢杆菌活菌数为1×10¹¹ CFU/g。尼龙袋制备参照《反刍动物营养学研究方法》[12]:购买孔径42 μm的尼龙过滤布,制成8 cm×12 cm规格的尼龙袋,然后用涤纶线双线缝合,酒精灯火焰对其密封、标号,用自来水进行浸泡以及冲洗,65 ℃烘24 h至恒重备用。

1.2 试验动物

动物试验在奶牛营养学北京市重点实验室延庆基地进行。
选用6头胎次(2~3胎)、体重[(662±57) kg]、泌乳天数[(160±22) d]、产奶量[(36.1±3.8) kg/d]相近的安装永久性瘘管的奶牛,随机分为3组,每组2头。采用3×3拉丁方设计进行试验,每组分别投喂0、5×109、5×1010 CFU/d解淀粉芽孢杆菌,试验期为3期,每期13 d,其中预试期10 d,正试期3 d,在正试期开始时用尼龙袋法测定奶牛瘤胃干物质消化率。试验期间采用全混合日粮(TMR)饲喂,每天饲喂3次,散栏饲养,自由采食,饮水充足。
选用30头胎次[(2.5±0.3)胎]、初始体重[(559.2±37.4) kg]、产奶量[(35.2±1.5) kg/d]、泌乳天数[(99±2) d]相近的荷斯坦奶牛,采用随机分组试验设计分成3组,每组10头。3组奶牛在晨饲前分别口腔投喂0(对照组)、5×10⁹、5×10¹⁰ CFU/d解淀粉芽孢杆菌,于2019年5月21日至2019年8月1日进行为期52 d的饲养试验,其中预试期10 d,正试期42 d。试验用基础饲粮组成及营养水平见表1。牛舍内每隔5 m装有1台悬挂式风扇(青州市开发区润江温控设备厂),当环境温度高于20 ℃时,风扇以2 m/s的速度运转,牛舍日平均相对湿度为(48.8±0.3)%。试验期间采用TMR饲喂,每天饲喂3次(07:00、13:00、19:00),散栏饲养,自由采食,饮水充足。正试期最后1 d采集奶牛瘤胃液样品、粪样和尿样。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)%

项目Items 含量Content
原料Ingredients
玉米青贮Corn silage 24.53
苜蓿干草Alfalfa hay 15.73
羊草Leymus chinensis 10.20
豆粕Soybean meal 12.32
玉米Corn 14.21
压片玉米Flaked corn 8.17
棉籽粕Cottonseed meal 3.31
甜菜粕Beet meal 4.81
干酒糟及其可溶物DDGS 3.11
预混料Premix1) 3.61
合计Total 100.00
营养水平Nutrient levels2)
干物质DM 91.55
粗灰分Ash 8.02
粗蛋白质CP 17.36
粗脂肪EE 4.56
产奶净能NEL/(MJ/kg) 7.13
酸性洗涤纤维ADF 18.50
项目Items 含量Content
中性洗涤纤维NDF 31.34
钙Ca 0.68
磷P 0.41

1)每千克预混料含有One kg of premix contained the following:Cu 1 250 mg,Zn 4 900 mg,Mn 1 760 mg,I 50 mg,Se 61 mg,VA 240 000 IU,VD 338 000 IU,VE 1 000 IU。

2)产奶净能根据NRC(2001)计算得出,其他营养水平为实测值。NEL was calculated according to NRC (2001), while the other nutrient levels were measured values.

1.3 样品的采集与测定

1.3.1 瘤胃干物质消化率的测定

尼龙袋(尺寸为8 cm×12 cm,孔径为42 μm)中放入10 g烘干的饲粮干物质,按照试验设计分组再分别放入0(对照组)、0.05(活菌数为5×10⁹ CFU)、0.5 g(活菌数为5×10¹⁰ CFU)解淀粉芽孢杆菌粉剂,于晨饲后2 h从瘤胃瘘管中投入瘤胃中,按“同时投入,依次取出”的原则,在瘤胃中分别培养0、2、6、12、24、36、48、72 h,0时间点的尼龙袋作为空白对照,不需要置于瘤胃中,直接放入39 ℃温水中,培养30 min后取出,放入烘箱中65 ℃烘干。培养结束后,取出的尼龙袋立即放入冷水中终止微生物活动,用自来水冲洗黏附在袋子外的饲料颗粒,用洗衣机洗15 min,将尼龙袋放置于65 ℃烘箱内,烘至恒重(大约24 h)并称重,按如下公式计算瘤胃干物质消化率:
A=[(B-C)/B]×100。
式中:A为瘤胃干物质消化率(%);B为培养前干物质的重量+尼龙袋的重量(g);C为培养后尼龙袋的总重量(g)。

1.3.2 瘤胃液的采集

在正试期最后1 d,晨饲前1 h通过口腔采液器进行瘤胃液采集,每头牛采取200 mL,4层纱布过滤后测定pH,将瘤胃液分装于15 mL离心管(添加25%偏磷酸)和5 mL冻存管中,保存于-80 ℃冰箱。分装于15 mL离心管(添加25%偏磷酸)的瘤胃液用于氨态氮(NH3-N)、MCP、VFA含量的测定。分装于5 mL冻存管的瘤胃液,用液氮速冻后用冰袋送往上海凌恩生物科技有限公司测定代谢物。

1.3.3 瘤胃发酵参数测定

pH:使用PHS-10型便捷式pH计测定。
NH3-N含量:参照王加启[12]介绍的比色法测定。
VFA含量:采用内标法,使用安捷伦7890B 型号气相色谱仪测定。取5 mL瘤胃液,10 000×g离心10 min,取1.5 mL上清液至2 mL离心管中,加入0.15 mL 25%偏磷酸溶液,用涡流混合器混匀,静置30 min,10 000×g离心15 min,取上清液1.5 mL置于测样瓶中。采用安捷伦7890B型号气相色谱仪测定瘤胃液中各种VFA和总挥发性脂肪酸(TVFA)的含量。测定条件:检测器温度280 ℃,柱温100 ℃,气化室200 ℃,高纯氮气作为载气,压力90 kPa,总流量为37.2 mL/min,空气流量400 mL/min,氢气流量40 mL/min,吹扫流量3 mL/min,分流比50∶1,线速度为23.4 cm/s。
MCP含量测定:参照黄婉玉[13]介绍的考马斯亮蓝比色法测定。取3 mL瘤胃液于离心管,13 000×g、4 ℃离心20 min,吸取上清液1 mL于1.5 mL离心管中,13 000×g、4 ℃离心20 min,弃去上清液,沉淀中加1 mL 0.25 mol/L NaOH混匀后转移至10 mL离心管,重复3次。100 ℃水浴10 min,吸取1 mL,13 000×g、4 ℃离心35 min,取上清液500 μL于10 mL离心管中,加入5 mL考马斯亮蓝溶液,涡旋振荡混匀,于波长595 nm处,使用酶标仪(Multiskan FC,赛默飞世尔仪器有限公司)测定吸光度值,计算瘤胃液中MCP的含量。

1.4 瘤胃代谢物的测定

根据之前研究结果以及本试验饲喂解淀粉芽孢杆菌对奶牛瘤胃发酵参数的影响研究结果进行剂量筛选,最终采用补饲5×10⁹ CFU/d解淀粉芽孢杆菌的奶牛的瘤胃液进行瘤胃代谢物的检测。仍以不补饲解淀粉芽孢杆菌的组为对照组(MC),补饲5×109 CFU/d解淀粉芽孢杆菌组为试验组(MT1)。

1.4.1 样本处理

将瘤胃液样本从-80 ℃冰箱取出,4 ℃解冻,取100 μL置于EP管中,加入400 μL质谱级甲醇沉淀蛋白,加入500 μL含0.1%甲酸的80%甲醇水溶液,涡旋振荡,冰浴静置5 min,15 000 r/min、4 ℃离心10 min,取一定量的上清加质谱级水稀释至甲醇含量为53%,并置于离心管中15 000×g、4 ℃离心10 min,收集上清,进样进行液相色谱-质谱(LC-MS)分析。
色谱条件:色谱柱为Hyperil Gold column (C18),柱温为40 ℃,流速为0.2 mL/min,正模式下,流动相A为0.1%甲酸,流动相B为甲醇;负模式下,流动相A为5 mmol/L醋酸铵,pH 9.0,流动相B为甲醇。
色谱梯度洗脱程序见表2
表2 色谱梯度洗脱程序

Table 2 Gradient elution procedure of chromatography%

时间
Time/min
流动相A
Mobile phase A
流动相B
Mobile phase B
0 98 2
1.5 98 2
12.0 0 100
14.0 0 100
14.1 98 2
17.0 98 2
质谱条件:采用AB Triple TOF 6600质谱仪对代谢物进行鉴定,采集样品的一级、二级谱图。电喷雾电离源(ESI源)条件为Ion Source Gas1(Gas1):40,Ion Source Gas2(Gas2):80,Curtain gas (CUR):30,source temperature:650 ℃,IonSapary Voltage Floating (ISVF) ±5 000 V(正负2种模式);二级质谱采用information dependent acquisition (IDA)获得,并且采用high sensitivity模式,De-clustering potential (DP):±60 V(正负2种模式),Collision Energy:(35±15) eV,IDA设置Exclude isotopes within 4 Da,Candidate ions to monitor per cycle:10。

1.4.2 代谢物鉴定与定量

将色谱-质谱检测的下机数据导入Compound Discoverer (CD)软件中,先进行保留时间、质荷比等参数的筛选,然后对不同样品根据保留时间偏差0.2 min和质量偏差5 ppm进行峰对齐,使鉴定更准确,再根据设置的质量偏差5 ppm、信号强度偏差30%、信噪比3、最小信号强度10 0000、加和离子等信息提取信号峰,同时根据峰面积进行定量,通过分子离子峰和碎片离子预测分子式,并与zCloud、mzVault和MassList数据库进行比对,利用空白样本数据去除背景离子,并对定量结果进行归一化,最后得到代谢物鉴定与定量结果。

1.4.3 多元数据分析

主成分分析(PCA):PCA能在整体上反映2组样本代谢的相似性或差异性。使用Bray-Curtis距离算法,不同颜色点代表不同分组的样本,2组样本点越接近,表明2组样本代谢物越相似。
偏最小二乘法判别分析(PLS-DA):运用偏最小二乘回归建立代谢物表达量与样品类别之间的关系模型,来实现对样品类别的预测;同时通过变量投影重要度(VIP)来衡量各代谢物的表达模式对各组样本分类判别的影响强度和解释能力,通常以VIP>1.0作为筛选标准。使用MetaX软件,建立PLS-DA模型,随后用Y随机排序进行置换检验,通过模拟200次PLS-DA模型,确定随机模型的模型拟合度(R2)和预测能力(Q2)参数。R2Q2越接近1,表明模型越稳定可靠,一般Q2>0.5可判定模型稳定可靠。

1.4.4 差异代谢物筛选

根据PLS-DA得到的VIP来初步筛选各组间的差异代谢物,进一步结合t检验进行组间差异比较,验证差异代谢物是否具有显著性,判别标准VIP>1且P<0.05。倍数差异(FC)表示该代谢物饲喂解淀粉芽孢杆菌前后含量的比值,FC>1.2表明饲喂解淀粉芽孢杆菌后含量升高,FC<0.833表明含量下降。

1.5 层次聚类与KEGG富集分析

首先使用标准分数(z-score)将代谢组学数据进行标准化,然后利用R语言中的pheatmap包绘制层次聚类热图。随后使用KEGG数据库进行差异代谢物的代谢通路富集分析。当富集通路的P<0.05时,被认为是具有统计学意义的富集。

1.6 数据处理与分析

瘤胃干物质消化率:所有数据用Excel 2007软件进行处理,采用SPSS 19.0对试验数据进行拉丁方设计的方差分析,组间采用Duncan氏法进行多重比较,P<0.05表示差异显著,P<0.01表示差异极显著,试验结果表示为平均值和均值标准误(SEM)。
瘤胃发酵参数:所有数据使用Excel 2007软件进行处理,采用SPSS 19.0的one-way ANOVA程序进行单因素方差分析,组间采用Duncan氏法进行多重比较,P<0.05表示差异显著,P<0.01表示差异极显著,试验结果表示为平均值和SEM。
代谢组学:首先将色谱-质谱检测的下机数据导入Compound Discoverer软件中,进行谱图处理及数据库搜库,得到代谢物的定性定量结果,然后对代谢物进行PCA和PLS-DA,揭示不同组别代谢物的差异。利用层次聚类与KEGG富集分析,揭示样本之间及代谢物和代谢物之间的关系,最后通过代谢通路等功能分析解释代谢物相关的生物学意义。

2 结果与分析

2.1 解淀粉芽孢杆菌对奶牛瘤胃干物质消化率的影响

瘤胃干物质消化率反映着奶牛对饲粮的利用程度,由表3可知,与对照组相比,补饲5×10¹⁰ CFU解淀粉芽孢杆菌在培养12、24、36、48、72 h时均可显著提高奶牛瘤胃干物质消化率(P<0.05);补饲5×10⁹ CFU解淀粉芽孢杆菌在培养36和48 h时可以显著提高奶牛瘤胃干物质消化率(P<0.05)。
表3 解淀粉芽孢杆菌对奶牛瘤胃干物质消化率的影响

Table 3 Effects of Bacillus amylolyticus on rumen dry matter digestibility of dairy cows%

时间
Time/h
解淀粉芽孢杆菌添加水平
Addition level of Bacillus amyloliquefaciens/(CFU/d)
均值标准误
SEM
P
P-value
0 5×10⁹ 5×10¹⁰
2 62.12 62.28 62.60 0.21 0.139
6 64.38 64.87 65.35 0.26 0.068
12 68.87a 69.18a 70.67b 0.18 0.020
24 72.78a 74.07a 77.15b 0.58 0.034
36 80.80a 87.15b 91.52c 0.25 0.001
48 78.18a 83.70b 88.53c 0.44 0.004
72 76.82a 77.32a 80.58b 0.31 0.011

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 解淀粉芽孢杆菌对奶牛瘤胃发酵参数的影响

表4可知,与对照组相比,补饲5×10⁹和5×10¹⁰ CFU/d解淀粉芽孢杆菌对奶牛瘤胃pH和NH3-N含量均没有显著影响(P>0.05);补饲5×109 CFU/d解淀粉芽孢杆菌可显著提高奶牛瘤胃中异丁酸、丁酸、异戊酸、戊酸、TVFA和MCP含量(P<0.05);补饲5×1010 CFU/d解淀粉芽孢杆菌可显著降低瘤胃中乙酸/丙酸(P<0.05),使奶牛瘤胃发酵模式由乙酸型向丙酸型转变,并且显著提高奶牛瘤胃异戊酸和异丁酸含量(P<0.05)。综合各项指标考虑,补饲5×109 CFU/d解淀粉芽孢杆菌时瘤胃发酵效果比较好。
表4 解淀粉芽孢杆菌对奶牛瘤胃发酵参数的影响

Table 4 Effects of Bacillus amylolyticus on rumen fermentation parameters of dairy cows

时间
Time/h
解淀粉芽孢杆菌添加水平
Addition level of Bacillus amyloliquefaciens/(CFU/d)
均值标准误
SEM
P
P-value
0 5×10⁹ 5×10¹⁰
pH 6.65 6.60 6.60 0.040 0.802
总挥发性脂肪酸TVFA/(mmol/L) 91.50a 107.44b 92.81a 2.175 0.001
氨态氮NH3-N/(mg/dL) 15.84 16.19 16.63 0.285 0.542
乙酸Acetic acid/(mmol/L) 60.81 64.42 59.64 1.771 0.561
丙酸Propionic acid/(mmol/L) 21.42 25.77 25.56 1.081 0.171
异丁酸Isobutyric acid/(mmol/L) 1.55a 2.23c 1.86b 0.074 0.001
丁酸Butyric acid/(mmol/L) 6.72a 8.08b 7.29ab 0.223 0.031
异戊酸Isovaleric acid/(mmol/L) 1.34a 2.00b 1.77b 0.078 0.001
戊酸Valeric acid/(mmol/L) 0.44a 0.58b 0.52ab 0.019 0.007
时间
Time/h
解淀粉芽孢杆菌添加水平
Addition level of Bacillus amyloliquefaciens/(CFU/d)
均值标准误
SEM
P
P-value
0 5×10⁹ 5×10¹⁰
乙酸/丙酸Acetic acid/propionic acid 2.85b 2.55ab 2.36a 0.021 0.001
微生物蛋白MCP/(mg/mL) 44.45a 70.33b 63.58ab 4.357 0.030

2.3 解淀粉芽孢杆菌对奶牛瘤胃代谢物的影响

2.3.1 奶牛瘤胃代谢物的PCA
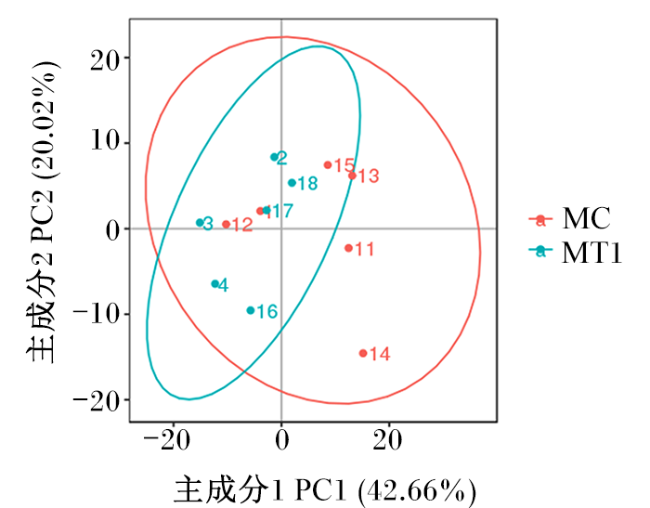
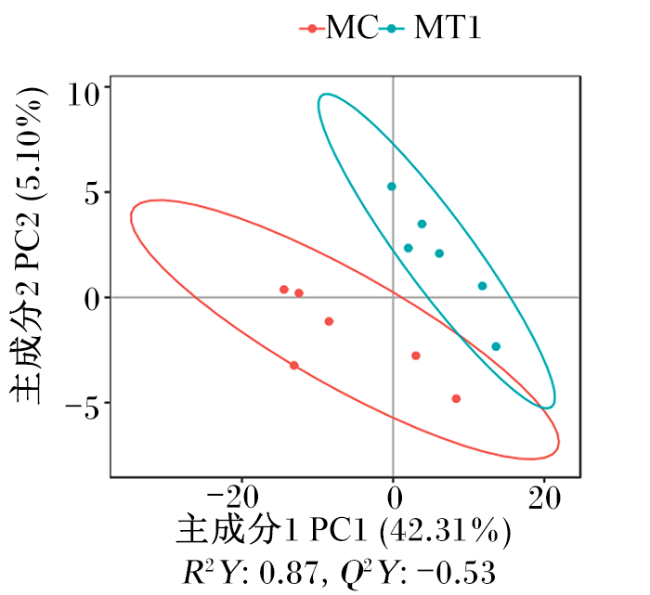
数据经处理后得到添加与不添加解淀粉芽孢杆菌的2组奶牛瘤胃液样本的分布情况,PCA图见图1。由PCA图可知,MC组与MT1组样本点较为分散,2组代谢物轮廓并不完全重叠,但由于存在重叠,需要进一步采用有监督模式识别方法PLS-LDA进行判别分析。
图1 MC组与MT1组奶牛瘤胃代谢物的PCA图

MC:MC组 MC group;MT1:MT1 group。下图同 the same as below。

Fig.1 PCA diagram of rumen metabolites of dairy cows in MC group and MT1 group

2.3.2 奶牛瘤胃代谢物的PLS-DA

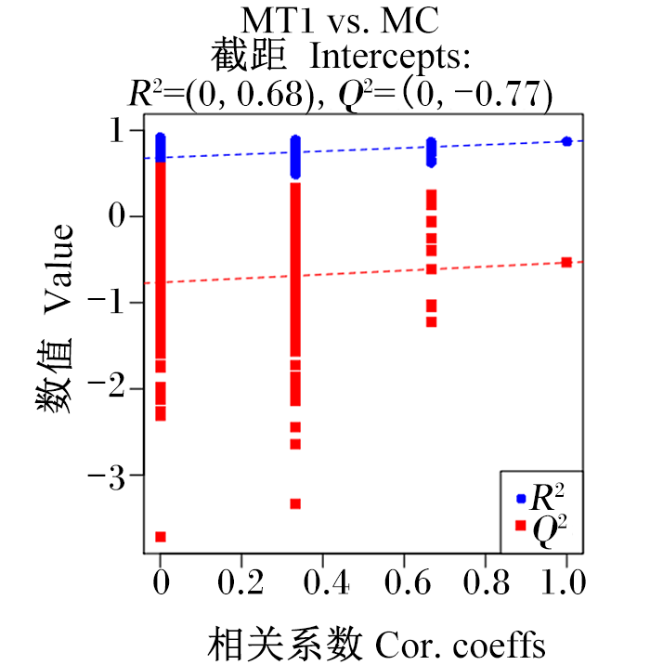
为能进一步阐释各组瘤胃代谢物之间的差异,对各组样品进行PLS-DA,PLS-DA得分图见图2。由PLS-DA得分图可知,MC组与MT1组瘤胃液样品可明显分离且同组样品在组内聚集良好,表明各组瘤胃液样品的组内差异不大,而组间差异明显;同时得到能够解释数据可靠性的模型验证参数 R2Q2,置换检验图参数Q2 intercept<0,表示模型未发生过拟合,且所有的Q2<0且值均小于R2值(图3),说明模型未出现过拟合现象,该PLS-DA模型有效、稳定。
图2 MC组与MT1组奶牛瘤胃代谢物的PLS-DA得分图

Fig.2 PLS-DA score map of rumen metabolites of dairy cows in MC group and MT1 group

图3 MC组与MT1组奶牛瘤胃代谢物的PLS-DA置换检验图

Fig.3 PLS-DA replacement test map of rumen metabolites of dairy cows in MC group and MT1 group

2.3.3 差异代谢物的筛选及鉴定

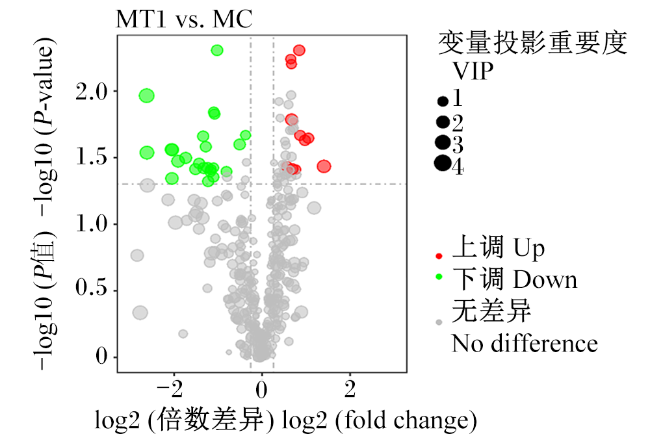
通过PLS-DA得到的VIP来初步筛选各组间的差异物,根据VIP>1、P<0.05、FC>1.2 或FC<0.833的标准来筛选差异代谢物。分析结果表明,共鉴定出差异显著的代谢物有50种,其中显著下调差异代谢物有36种,包括DL-精氨酸、脯氨酸、DL-3-羟降缬氨酸、沙丁胺、N-乙酰谷氨酸、吲哚-3-乳酸、山奈酚、甲基苯基缩水甘油酸乙酯、金雀异黄素、L-焦谷氨酸、石竹烯氧化物、γ-谷氨酰亮氨酸、脱氧皮质酮21-葡萄糖苷、黄豆苷元、章鱼碱、糖精蛋白、芥子酸、毒扁豆碱、D-蛋氨酸、大豆皂苷Ⅰ、顺式乌头酸、反肉桂酸、前列腺素j2、D-木糖醇、3-羟基-4-甲氧基肉桂酸、L-古洛糖内酯、D-葡萄糖酸、D-蔗糖酸等;显著上调的差异代谢产物14种,包括氯苯甲酰胺、毛果芸香碱、甲基胆碱、帕潘立酮、胸苷、D-葡萄糖6-磷酸、4-硝基苯酚、脱氧胆酸、D-七庚糖7-磷酸等。最后用火山图形式将筛选的差异代谢物进行可视化演示,见图4
图4 正离子模式下奶牛瘤胃差异代谢物火山图

Fig.4 Volcano plot of differential metabolites in rumen of dairy cows in positive ion mode

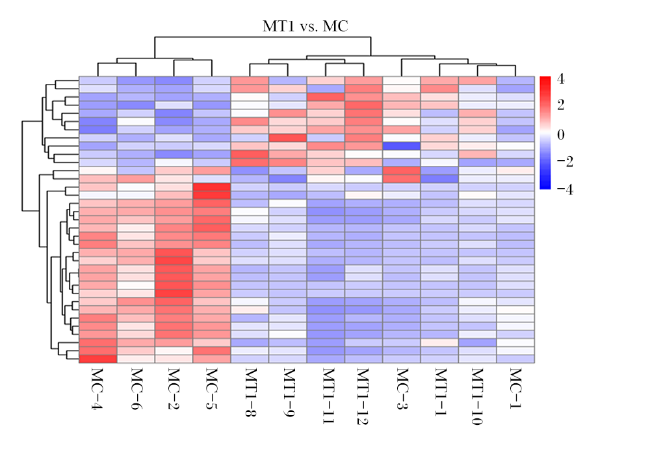
对差异代谢物进层次聚类分析,当同组样本能够出现在同一簇中时,表明筛选出的差异代谢物可靠性较高。代谢过程中反应步骤相近的代谢物聚类在同一簇内,表现出类似的表达模式,见图5
图5 正离子模式下差异代谢物层次聚类结果

Fig.5 Hierarchical clustering results of differential metabolites in positive ion pattern

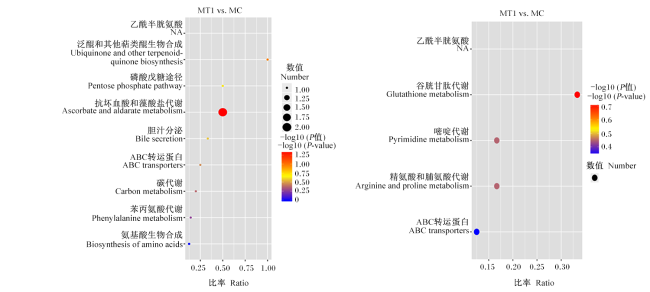
利用KEGG数据库对差异代谢物进行代谢通路注释,一般以P<0.05作为判别富集显著性的标准。本研究通过Fisher检验对50种差异代谢物进行KEGG通路富集分析,找到的差异代谢物相关的代谢通路分别是抗坏血酸和藻酸盐代谢、泛醌和其他萜类醌的生物合成、磷酸戊糖途径、胆汁分泌、ABC转运蛋白、碳代谢、苯丙氨酸代谢、氨基酸的生物合成、谷胱甘肽代谢、嘧啶代谢、精氨酸和脯氨酸代谢通路,详见图6。11条代谢通路对应的差异代谢物如表5所示,11条差异代谢通路中,富集差异显著的代谢通路为抗坏血酸和藻酸盐代谢(P<0.05)。
图6 KEGG通路富集分析结果

左图为正离子模式KEGG富集通路,右图为负离子模式KEGG富集通路。图中圆点颜色深浅表示P值的大小,圆点面积大小表示参与该通路差异代谢物的多少。

Fig.6 KEGG pathway enrichment analysis results

Left figure showed the positive ion mode KEGG enrichment pathways, and right figure showed the negative ion mode KEGG enrichment pathways. The color of the dots in the figure indicated the size of the P-value, and the aera of the dots indicated the number of differential metabolites involved in this pathway.

表5 11条主要代谢通路对应的差异代谢物

Table 5 Differential metabolites corresponding to 11 main metabolic pathways

通路名称
Path names
差异代谢物
Differential metabolites
P
P-value
谷胱甘肽代谢Glutathione metabolism L-焦谷氨酸↓ 0.193
嘧啶代谢Pyrimidine metabolism 胸苷↑ 0.357
精氨酸和脯氨酸代谢Arginine and proline metabolism 章鱼碱↓ 0.357
ABC转运蛋白ABC transporters D-蛋氨酸↓ 0.451
抗坏血酸和藻酸盐代谢Ascorbate and aldarate metabolism L-葡萄糖酸盐↑、抗坏血酸↑、丙酮酸↑ 0.046
泛醌和其他萜类醌生物合成
Ubiquinone and other terpenoid-quinone biosynthesis
反式肉桂酸↓ 0.100
磷酸戊糖途径Pentose phosphate pathway D-七庚糖7-磷酸↑ 0.192
胆汁分泌Bile secretion 脱氧胆酸↑ 0.275
碳代谢Carbon metabolism D-七庚糖7-磷酸↑ 0.421
苯丙氨酸代谢Phenylalanine metabolism 反式肉桂酸↓ 0.541
氨基酸生物合成Biosynthesis of amino acids D-七庚糖7-磷酸↑ 1.000

↓表示MT1组中含量下降;↑表示MT1组中含量上升。

↓ indicated that the content in the MT1 group decreased; ↑ indicated that the content in the MT1 group increased.

3 讨论

3.1 解淀粉芽孢杆菌对奶牛瘤胃干物质消化率的影响

Hassan等[14]补饲5.6×10¹⁴ CFU/d益生菌后提高了羔羊的干物质消化率和营养物质消化率。Zhang等[15]研究表明,在荷斯坦犊牛饲粮中添加植物乳杆菌可提高犊牛的营养物质消化率。刘程[16]也表明,在奶牛饲粮中添加20 g/头复合益生菌(枯草芽孢杆菌、地衣芽孢杆菌和米曲霉)能通过改善泌乳奶牛瘤胃发酵,提高营养物质消化率。研究发现,解淀粉芽孢杆菌可产生α-淀粉酶、蛋白酶、水解酶和脂肪酶等,这些酶能够降解植物性碳水化合物以及木质纤维素物质,使饲料中的限制因子转化成能被动物利用的营养物质,利于动物消化吸收,从而提高饲料消化率[6]。在本试验中,补饲解淀粉芽孢杆菌在多个时间点均可以显著提高奶牛瘤胃干物质消化率,可能是因为解淀粉芽孢杆菌促进了奶牛对饲粮中营养物质的消化吸收,从而提高瘤胃干物质消化率。研究表明,瘤胃pH低于6.0使瘤胃微生物的生长繁殖受到抑制,造成瘤胃干物质消化率的下降[17]。在本研究中,对照组和补饲解淀粉芽孢杆菌组奶牛瘤胃pH均在6.0以上,表明解淀粉芽孢杆菌对瘤胃微生物的生长繁殖无抑制作用,对瘤胃干物质消化率无负面影响。在本试验中,补饲解淀粉芽孢杆菌的2个试验组奶牛的瘤胃干物质消化率在36 h达到最高,但48和72 h时有下降趋势,可能是随着时间的延长解淀粉芽孢杆菌的活性会降低。

3.2 解淀粉芽孢杆菌对奶牛瘤胃发酵参数的影响

瘤胃pH是衡量瘤胃酸碱平衡状况和瘤胃微生物发酵的重要指标,对维持瘤胃消化代谢发挥着重要作用[18]。适宜的瘤胃pH是瘤胃微生物代谢活动的前提,Wanapat等[19]认为,反刍动物瘤胃液的正常pH一般在6.0~7.2。在本试验中,补饲解淀粉芽孢杆菌对奶牛瘤胃pH无显著影响,且3组奶牛瘤胃pH均在正常范围之内。NH3-N是微生物合成MCP的前体物质,其含量是瘤胃内饲粮中含氮物质降解及微生物对NH3-N利用的综合反映。反刍动物瘤胃NH3-N含量的最佳范围为5~30 mg/dL[20]。在本研究中,3组试验奶牛瘤胃NH3-N含量都在此范围内,且饲喂添加解淀粉芽孢杆菌饲粮的奶牛瘤胃NH3-N含量有上升趋势,且补饲5×109 CFU/d解淀粉芽孢杆菌时奶牛瘤胃MCP含量显著高于对照组,说明解淀粉芽孢杆菌调控瘤胃NH3-N含量提高了微生物对饲粮中含氮物质的降解效率,进而促进了瘤胃发酵。
VFA是反刍动物瘤胃发酵饲粮的重要产物,为反刍动物提供能量和维持瘤胃环境稳定。VFA主要包括乙酸、丙酸、丁酸、异丁酸、戊酸和异戊酸,其中乙酸、丙酸和丁酸约占瘤胃TVFA的95%,是反刍动物的主要能量来源[21-22]。乙酸是反刍动物重要的VFA,是脂肪酸合成和乳脂合成的主要成分[23]。丙酸通过糖异生作用合成葡萄糖为机体提供能量。丁酸经瘤胃壁吸收,促进瘤胃上皮发育,有利于营养物质的消化吸收[24]。异丁酸促进瘤胃纤维分解菌的生长与繁殖,促进瘤胃发酵[25]。异戊酸和戊酸促进瘤胃氨基酸的生物合成,进而提高MCP的合成[26]。研究表明,饲喂奶牛1×10¹¹ CFU/d益生菌显著提高了瘤胃中丙酸、戊酸和TVFA的含量[27]。反刍动物饲粮补充瘤胃调控性饲料添加剂异位酸(异戊酸、异丁酸和戊酸)能够提高瘤胃TVFA、乙酸和丁酸含量,正向调控瘤胃功能,促进瘤胃内消化代谢,促进瘤胃细菌的生长繁殖和MCP的合成[25-26]。在本研究中,补饲5×109 CFU/d解淀粉芽孢杆菌显著提高了奶牛瘤胃TVFA、异丁酸、丁酸和戊酸含量,补饲5×1010 CFU/d解淀粉芽孢杆菌虽也有一定程度的提高,但差异并不显著。这说明适量的解淀粉芽孢杆菌可以在一定程度上促进瘤胃发酵,改变瘤胃中VFA的比例。
瘤胃MCP在提供反刍动物蛋白质方面发挥重要作用,可为畜体提供40%~60%的蛋白质,还能够提供动物生长、维持和生产所需的大部分氨基酸[28]。研究表明,NH3-N是MCP合成的主要前体物质[29],异丁酸、异戊酸和戊酸能够促进瘤胃微生物对NH3-N的摄取利用,进而提高瘤胃MCP的合成[30]。在本研究中,补饲解淀粉芽孢杆菌提高了奶牛MCP含量,可能是解淀粉芽孢杆菌提高了瘤胃中异丁酸、异戊酸和戊酸含量,促进了NH3-N和MCP的生成。

3.3 解淀粉芽孢杆菌对奶牛瘤胃代谢组的影响

11条差异代谢通路中,抗坏血酸和藻酸盐代谢通路为差异显著的代谢通路。抗坏血酸和藻酸盐代谢通路中检测到3种上调差异代谢物,分别是L-抗坏血酸、丙酮酸和D-葡萄糖酸盐。D-葡萄糖酸盐可以作为饲料添加剂,改善动物胃肠道菌落环境[31]。在微生物的代谢过程中,D-葡萄糖酸盐被D-葡萄糖酸盐脱水酶脱水为D-5-酮基-4-脱氧葡萄糖酸(KDG),然后通过KDG醛缩酶将KDG转化为酒石酸半醛,酒石酸酯半醛还原酶将酒石酸酯半醛还原为D-甘油酸酯,D-甘油酸酯被甘油酸酯激酶磷酸化,产生3-磷酸甘油酸酯被微生物利用,促进微生物的生长和繁殖[32-33]。在本试验中,补饲解淀粉芽孢杆菌使得瘤胃代谢物D-葡萄糖酸盐显著上调,可能促进瘤胃微生物的生长和繁殖。在本试验中,补饲解淀粉芽孢杆菌提高了奶牛瘤胃中TVFA含量,可以推测D-葡萄糖酸盐的上调促进了奶牛瘤胃微生物的生长繁殖,进而使瘤胃中TVFA含量升高。L-抗坏血酸是机体必需的营养素,具有多种生理功能,能维持机体正常的生命活动,增强机体抗病和解毒能力,能通过自身氧化还原反应保护机体免受氧化应激[34]。丙酮酸能够下调炎症信号通路核因子-κB(NF-κB)的表达,抑制促炎因子肿瘤坏死因子-α(TNF-α)和白细胞介素-1β(IL-1β)的释放,降低机体的炎症反应[35]。这表明补饲解淀粉芽孢杆菌后奶牛瘤胃代谢物L-抗坏血酸和丙酮酸的上调与增强机体抗氧化和免疫力有关,这也印证了前期试验研究结果饲喂解淀粉芽孢杆菌可以提高奶牛免疫能力和抗氧化能力[7]。总而言之,解淀粉芽孢杆菌通过影响瘤胃代谢物L-抗坏血酸、丙酮酸和D-葡萄糖酸盐的含量,改善瘤胃发酵功能,并且提高奶牛免疫能力和抗氧化能力。

4 结论

解淀粉芽孢杆菌通过影响瘤胃代谢物含量,改善瘤胃发酵功能,来提高奶牛瘤胃干物质消化率。综合分析认为,奶牛补饲5×10⁹ CFU/d解淀粉芽孢杆菌效果较佳。
[1]
GIGER-REVERDIN S, DOMANGE C, BROUDISCOU L P, et al. Rumen function in goats,an example of adaptive capacity[J]. Journal of Dairy Research, 2020, 87(1):45-51.

DOI

[2]
NEWBOLD C J, RAMOS-MORALES E. Review:ruminal microbiome and microbial metabolome:effects of diet and ruminant host[J]. Animal, 2020,14 (Suppl.1):s78-s86.

[3]
ELGHANDOUR M M Y, TAN Z L, ABU HAFSA S H, et al. Saccharomyces cerevisiae as a probiotic feed additive to non and pseudo-ruminant feeding:a review[J]. Journal of Applied Microbiology, 2020, 128(3):658-674.

DOI

[4]
MINGMONGKOLCHAI S, PANBANGRED W. Bacillus probiotics:an alternative to antibiotics for livestock production[J]. Journal of Applied Microbiology, 2018, 124(6):1334-1346.

DOI

[5]
XIAOLONG G, CAIHUAN K, MO Z, et al. Effects of the probiotic Bacillus amyloliquefaciens on the growth,immunity,and disease resistance of Haliotis discus hannai[J]. Fish & Shellfish Immunology, 2019, 94:617-627.

[6]
王美玲, 吴骏晨, 朱赟程, 等. 解淀粉芽孢杆菌在动物生产中应用的研究进展[J]. 中国畜牧杂志, 2017, 53(2):19-23.

WANG M L, WU J C, ZHU Y C, et al. Research progress on application of Bacillus amyloliquefaciens in animal production[J]. Chinese Journal of Animal Science, 2017, 53(2):19-23. (in Chinese)

[7]
李玉琴, 李义, 黄新, 等. 解淀粉芽孢杆菌对奶牛泌乳性能、乳成分及血清生化、免疫和抗氧化指标的影响[J]. 动物营养学报, 2022, 34(2):979-988.

LI Y Q, LI Y, HUANG X, et al. Effects of Bacillus amyloliquefaciens on lactation performance,milk composition and serum biochemical,immune and antioxidant indexes of dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):979-988. (in Chinese)

[8]
林国栋. 解淀粉芽孢杆菌GBacillus-9菌制剂对羔羊腹泻防治效果的初步探究[D]. 硕士学位论文. 杭州: 浙江理工大学, 2019.

LIN G D. Preliminary study on the effect of Bacillus amyloliquefaciens GBacillus-9 preparation on the prevention and treatment of diarrhea in lambs[D]. Master’s Thesis. Hangzhou: Zhejiang University of Technology, 2019. (in Chinese)

[9]
ZHANG N C, WANG L, WEI Y. Effects of Bacillus amyloliquefaciens and Bacillus pumilus on rumen and intestine morphology and microbiota in weanling Jintang black goat[J]. Animals, 2020, 10(9):1604.

DOI

[10]
栾素军, 邢焕, 孙永波, 等. 解淀粉芽孢杆菌在畜禽养殖中的应用研究进展[J]. 中国畜牧兽医, 2016, 43(10):2615-2620.

LUAN S J, XING H, SUN Y B, et al. Research progress on Bacillus amyloliquefaciens in animal breeding industry[J]. China Animal Husbandry & Veterinary Medicine, 2016, 43(10):2615-2620. (in Chinese)

[11]
AHMED S T, ISLAM M, MUN H S, et al. Effects of Bacillus amyloliquefaciens as a probiotic strain on growth performance,cecal microflora,and fecal noxious gas emissions of broiler chickens[J]. Poultry Science, 2014, 93(8):1963-1971.

DOI

[12]
王加启. 反刍动物营养学研究方法[M]. 北京: 现代教育出版社, 2011.

WANG J Q. Methods in ruminant nutrition research[M]. Beijing: Modern Education Press, 2011. (in Chinese)

[13]
黄婉玉, 曹炜, 李菁, 等. 考马斯亮蓝法测定果汁中蛋白质的含量[J]. 食品与发酵工业, 2009, 35(5):160-162.

HUANG W Y, CAO W, LI J, et al. Determination of protein content in juice by Coomassie brilliant blue[J]. Food and Fermentation Industries, 2009, 35(5):160-162. (in Chinese)

[14]
HASSAN A, GADO H, ANELE U Y, et al. Influence of dietary probiotic inclusion on growth performance,nutrient utilization,ruminal fermentation activities and methane production in growing lambs[J]. Animal Biotechnology, 2020, 31(4):365-372.

DOI

[15]
ZHANG R, ZHOU M, TU Y, et al. Effect of oral administration of probiotics on growth performance,apparent nutrient digestibility and stress-related indicators in Holstein calves[J]. Journal of Animal Physiology and Animal Nutrition, 2016, 100(1):33-38.

DOI

[16]
刘程. 复合益生菌对泌乳中期奶牛生产性能和瘤胃菌群的影响[D]. 硕士学位论文. 杭州: 浙江大学, 2020.

LIU C. Effect of compound probiotics on milk performance and rumen flora of mid-lactation dairy cows[D]. Master’s Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[17]
UPADHAYA S D, RUDEAUX F, KIM I H. Effects of inclusion of Bacillus subtilis (Gallipro) to energy- and protein-reduced diet on growth performance,nutrient digestibility,and meat quality and gas emission in broilers[J]. Poultry Science, 2019, 98(5):2169-2178.

DOI

[18]
杨宝钰, 王娇, 颜轶男, 等. 奶牛瘤胃pH、消化酶活性及原虫数量的日动态变化研究[J]. 动物营养学报, 2021, 33(3):1534-1544.

YANG B Y, WANG J, YAN Y N, et al. Daily dynamic changes of rumen pH,digestive enzyme activities and protozoa number in dairy cows[J]. Chinese Journal of Animal Nutrition, 2021, 33(3):1534-1544. (in Chinese)

[19]
WANAPAT M, VIENNASAY B, MATRA M, et al. Supplementation of fruit peel pellet containing phytonutrients to manipulate rumen pH,fermentation efficiency,nutrient digestibility and microbial protein synthesis[J]. Journal of the Science of Food and Agriculture, 2021, 101(11):4543-4550.

DOI

[20]
THAO N T, WANAPAT M, CHERDTHONG A, et al. Effects of eucalyptus crude oils supplementation on rumen fermentation,microorganism and nutrient digestibility in swamp buffaloes[J]. Asian-Australasian Journal of Animal Sciences, 2014, 27(1):46-54.

DOI

[21]
STORM A C, KRISTENSEN N B. Effects of particle size and dry matter content of a total mixed ration on intraruminal equilibration and net portal flux of volatile fatty acids in lactating dairy cows[J]. Journal of Dairy Science, 2010, 93(9):4223-4238.

DOI PMID

[22]
BAASKE L, GÄBEL G, DENGLER F. Ruminal epithelium:a checkpoint for cattle health[J]. Journal of Dairy Research, 2020, 87(3):322-329.

DOI

[23]
WANG Y C, YU S J, LI Y, et al. Pilot study of the effects of polyphenols from chestnut involucre on methane production,volatile fatty acids,and ammonia concentration during in vitro rumen fermentation[J]. Animals, 2021, 11(1):108.

DOI

[24]
YOHE T T, SCHRAMM H, WHITE R R, et al. Form of calf diet and the rumen.Ⅱ:impact on volatile fatty acid absorption[J]. Journal of Dairy Science, 2019, 102(9):8502-8512.

DOI

[25]
刘永嘉, 王聪, 刘强, 等. 日粮补充异丁酸对犊牛生长性能、瘤胃发酵和纤维分解菌菌群的影响[J]. 草业学报, 2019, 28(7):151-158.

LIU Y J, WANG C, LIU Q, et al. Effects of isobutyrate supplementation on growth performance,ruminal fermentation and cellulolytic bacterial abundance in calves[J]. Acta Prataculturae Sinica, 2019, 28(7):151-158. (in Chinese)

[26]
张振威, 朱明霞, 王长法. 异位酸影响反刍动物瘤胃代谢和生产性能的研究进展[J]. 动物营养学报, 2022, 34(3):1408-1415.

ZHANG Z W, ZHU M X, WANG C F. Effects of isoacids on ruminal metabolism and performance in rumiants:a review[J]. Chinese Journal of Animal Nutrition, 2022, 34(3):1408-1415. (in Chinese)

[27]
SUN P, WANG J Q, DENG L F. Effects of Bacillus subtilis natto on milk production,rumen fermentation and ruminal microbiome of dairy cows[J]. Animal, 2013, 7(2):216-222.

DOI

[28]
DIREKVANDI E, MOHAMMADABADI T, SALEM A Z M. Effect of microbial feed additives on growth performance,microbial protein synthesis,and rumen microbial population in growing lambs[J]. Translational Animal Science, 2020, 4(4):txaa203.

DOI

[29]
余诗强, 熊安然, 潘予琮, 等. 青蒿提取物对泌乳奶牛瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2021, 33(11):6431-6444.

YU S Q, XIONG A R, PAN Y C, et al. Effects of Artemisia annua L. extracts on rumen fermentation parameters and microflora of lactating dairy cows[J]. Chinese Journal of Animal Nutrition, 2021, 33(11):6431-6444. (in Chinese)

[30]
CHANG M N, MA F T, WEI J Y, et al. Live Bacillus subtilis natto promotes rumen fermentation by modulating rumen microbiota in vitro[J]. Animals, 2021, 11(6):1519.

DOI

[31]
TRUDGILL P W, WIDDUS R. D-glucarate catabolism by pseudomonadaceae and enterobacteriaceae[J]. Nature, 1966, 211(5053):1097-1099.

DOI

[32]
BLUMENTHAL H J, FISH D C. Bacterial conversion of D-glucarate to glycerate and pyruvate[J]. Biochemical and Biophysical Research Communications, 1963, 11(3):239-243.

DOI

[33]
KAY H D. Note on the variation in the end-products of bacterial fermentation resulting from increased combined oxygen in the substrate[J]. Biochemical Journal, 1926, 20(2):321-329.

PMID

[34]
WANG P P, ZENG W Z, XU S, et al. Current challenges facing one-step production of L-ascorbic acid[J]. Biotechnology Advances, 2018, 36(7):1882-1899.

DOI

[35]
PERNOMIAN L, DUARTE-SILVA M, DE BARROS CARDOSO C R. The aryl hydrocarbon receptor (AHR) as a potential target for the control of intestinal inflammation:insights from an immune and bacteria sensor receptor[J]. Clinical Reviews in Allergy & Immunology, 2020, 59(3):382-390.

文章导航

/