综述

褪黑素对反刍动物胃肠道生理功能的影响

  • 许悦雯 ,
  • 邱晓媛 ,
  • 郭广振 ,
  • 尹福泉 , *
展开
  • 广东海洋大学滨海农学院,湛江 524088
* 尹福泉,教授,硕士生导师,E-mail:

许悦雯(1999—),女,江苏南京人,硕士研究生,专业为动物营养与饲料科学。E-mail:

收稿日期: 2022-06-17

  网络出版日期: 2023-01-11

基金资助

广东省农业农村厅——广东省现代草牧业(羊)产业技术体系项目(2019KJ127)

广东省科技专项资金(“大专项”+“任务清单”)项目——雷州山羊保育繁推一体化生态健康养殖关键技术创新与示范

Effects of Melatonin on Gastrointestinal Tract Physiological Function of Ruminant

  • XU Yuewen ,
  • QIU Xiaoyuan ,
  • GUO Guangzhen ,
  • YIN Fuquan , *
Expand
  • College of Coastal Agricultural Sciences, Guangdong Ocean University, Zhanjiang 524088, China
* professor, E-mail:

Received date: 2022-06-17

  Online published: 2023-01-11

摘要

褪黑素(MT)是调节胃肠道运动、免疫功能及微生物菌群结构等的胺类激素,其前体物质(色氨酸)是微生物群-肠-脑轴的信号递质。目前有关MT的研究多集中于单胃动物,鲜见MT对反刍动物的综述报道。因此,本综述将从MT对反刍动物胃肠运动、摄食行为、生产性能以及胃肠道微生物的作用机制进行阐述,以期为MT作为反刍动物治疗辅助剂、饲料添加剂的价值提供参考。

本文引用格式

许悦雯 , 邱晓媛 , 郭广振 , 尹福泉 . 褪黑素对反刍动物胃肠道生理功能的影响[J]. 动物营养学报, 2023 , 35(1) : 43 -53 . DOI: 10.3969/j.issn.1006-267x.2023.01.005

Abstract

Melatonin (MT) is an amine hormone that regulates gastrointestinal motility, immune function and microbial flora structure, and its precursor (tryptophan) is the signal transmitter of microbial flora-gut-brain axis. At present, the research on MT is mostly focused on monogastric animals, but there are few comprehensive reports on ruminants. Therefore, this review will elaborate the action mechanism of MT on gastrointestinal movement, feeding behavior, production performance and gastrointestinal microorganisms of ruminants, so as to provide reference for the value of MT as a therapeutic adjuvant and feed additive for ruminants.

褪黑素(melatonin,MT)其化学名称为N-乙酰基-5甲氧基色胺,又称松果体素,是一种由松果体合成的吲哚杂环类色氨酸衍生物。MT可与其受体结合发挥其生物学作用,具有调节动物生物节律、免疫等作用[1]。存在于松果体内的MT可以通过神经元受体和激素对胃肠道运动节律和生理功能进行调控,从而对动物的摄食行为和生产性能产生影响[2];MT不仅存在于松果体内,近期研究还发现在哺乳动物胃肠道中也广泛存在,由于其很强的抗氧化能力和清除自由基的能力,对胃肠道具有一定的保护作用,可以防止胃肠道黏膜受损,增强胃肠道菌群丰度等[3]。因此,本文旨在概述MT通过神经系统和内分泌系统对反刍动物胃肠道生理功能发挥的积极影响,以期阐明MT对反刍动物胃肠道的作用机制以及为调控胃肠道健康提供一定的参考。

1 MT的合成分泌及其作用机制

胃肠道黏膜中肠嗜铬细胞是产生MT的主要来源,其主要通过色氨酸羟化酶(tryptophan hydroxylase,TPH)、芳香族L-氨基酸脱羧酸(aromatic L-aminoacid decarboxylase,AADC)、5-羟色胺-N-乙酰基转移酶(serotonin-N-acetyltransferase,AA-NAT)、乙酰血清素甲基转移酶(acetylserotonin O-methyltransferase,ASMT)4种酶依次合成5-羟基色氨酸(5-hydroxytryptophan,5-HTP)、5-羟色胺(serotonin,5-HT)、N-乙酰基-5-羟色胺(N-acetylserotonin,aHT)和MT[4],此外,胃肠道MT的分泌可能还会受到营养因素的影响[5]。而松果体的MT不仅受酶活性影响还受光影响[6],当视网膜光感受器细胞受光刺激产生电信号,经下丘脑纤维束传递至视交叉上核(suprachiasmatic nucleus,SCN),SCN调节下丘脑神经末梢释放去甲肾上腺素(norepinephrine,NE),并与松果体中的肾上腺素能β1受体结合,促使交感神经兴奋,增加了环磷酸腺苷(cyclic adenosine monophosphate,cAMP)产生,进一步激活了AA-NAT合成,从而节律性地调节MT合成与分泌,一旦分泌,就会迅速分泌到脑脊液和血液中[7-8]
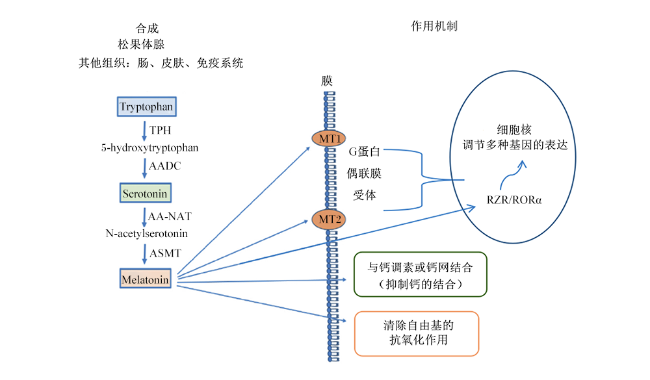
MT在体内有2种作用机制:受体介导与非受体介导。非受体介导是允许MT自由穿过细胞和核膜,其与钙调蛋白以及钙网蛋白进行结合,从而调控信号通路;也可直接调节抗氧化还原过程或清除自由基(图1)[9]。受体介导主要有G蛋白偶联受体家族MT1、MT2及孤核受体RZR/RORα,MT可调节ROR转录活性,促进ROR靶基因的转录,而MT3是醌还原酶家族,它与细胞的异种生物代谢有关,并不完全符合MT受体的标准[10]。此外,MT受体在细胞内信号传导主要是通过改变腺苷酸环状细胞、磷脂酶C(phospholipase C,PLC)、鸟苷酸环化酶以及钙和钾通道的活性来发挥作用[11]
图1 MT的合成途径和作用

Tryptophan: 色氨酸;5-hydroxytryptophan:5-羟基色氨酸;Serotonin:5-羟色胺;N-acetylserotonin:N-乙酰基-5-羟色胺;TPH:色氨酸羟化酶 tryptophan hydroxylase;AADC:芳香族L-氨基酸脱羧酶 aromatic L-amino acid decarboxylase;ASMT:乙酰血清素甲基转移酶 N-acetylserotonin O-methyltransferase;AA-NAT:N-乙酰基-5-羟色胺 serotonin-N-acetyltransferase;Melatonin:褪黑素。

Fig.1 Synthesis pathway and function of melatonin[12]

2 反刍动物中MT的来源与分布

反刍动物中MT的来源可能有3种:1)通过胃肠道黏膜的肠嗜铬细胞分泌的MT。由于MT有更高的亲脂性,可以通过固有层和黏膜下层中的血管移动到更深层,作用于肌间神经系统,调节胃肠运动[13]。而对于MT的分布,起初发现奶牛的瘤胃肌层和瘤胃液中有MT,并且在瘤胃肌层MT的含量远远高于在瘤胃液中的MT含量[14];Bubenik等[15]继续研究发现,在瘤胃的黏膜层上MT含量最高,但明显低于回肠、盲肠。不同的是蒋玉婷等[16]研究发现,合成MT的关键合成酶AA-NAT和ASMT在羊的皱胃上蛋白表达量最高,且主要合成部位在黏膜层,说明绵羊各胃中不仅具有自主合成MT途径而且MT在胃肠道中的分布具有种属差异性。2)还有一部分MT可能来源于血液循环。欧阳佳良[17]进行了对泌乳奶牛瘤胃MT含量昼夜节律变化的研究,发现了瘤胃内不仅存在具有昼夜节律性的MT,而且瘤胃液中的MT含量与血清中的MT含量呈正相关。3)此外,瘤胃内的MT也可能来源于反刍动物的唾液。因为瘤胃内几乎有100 L左右的唾液,而唾液中含有大量的激素,比如MT和催乳素(prolactin,PRL)[18]

3 MT通过神经系统对胃肠运动的调控

在哺乳动物胃肠道中含有多种神经元受体,如5-HT受体、胆碱能受体、多巴胺(dopamine,DA)受体、γ-氨基丁酸神经元受体、促肾上腺皮质激素释放激素受体和肾上腺素受体等,从而对胃肠道的运动和生理功能产生影响[19]

3.1 5-HT受体和MT受体

在神经调节中,反刍动物胃肠道运动主要是通过迷走神经和交感神经进行调控,其中迷走神经中的蛋白偶联受体65(G protein-coupled receptor 65,GPR65)和胰高糖素样肽-1(glucagon-like peptide-1,GLP-1)受体神经元可能是引起反刍行为的主要原因,由于GPR65和GLP-1神经元虽参与不同的神经回路,但最终都投射到孤束核,因此,孤束核可能是连接大脑与瘤网胃的重要器官,并受MT前体物质5-HT的调节[20]。有研究报道,在山羊中发现5-HT受体激动剂对前胃收缩的抑制作用是由于与外周和中枢5-HT受体的相互作用,使平滑肌舒张导致通过迷走神经传入传递到中枢神经系统的信号发生变化[21]。而5-HT和MT之间存在动态平衡,在胃肠道中,高剂量的MT抑制胃肠道肌肉的自发性收缩或血清素诱导的收缩。相反,低剂量的MT刺激肠收缩主要与迷走神经传入纤维上的5-HT3受体相互作用,引起胃肠道肌肉收缩[22]。此外,MT2受体作为迷走神经信号与MT结合,可以增加细胞内钙离子(Ca2+)含量从而刺激一氧化氮(nitric oxide,NO)、降钙素基因相关肽等介质的产生介导胃血流量增加、清除活性氧代谢物和抑制胃酸分泌,对胃肠道进行保护[23-24],而MT1受体可以偶联蛋白介导磷酸肌醇特异性磷脂酶活性和刺激细胞内Ca2+的水平并引起肌肉收缩[25]

3.2 胆碱能受体和肾上腺素能受体

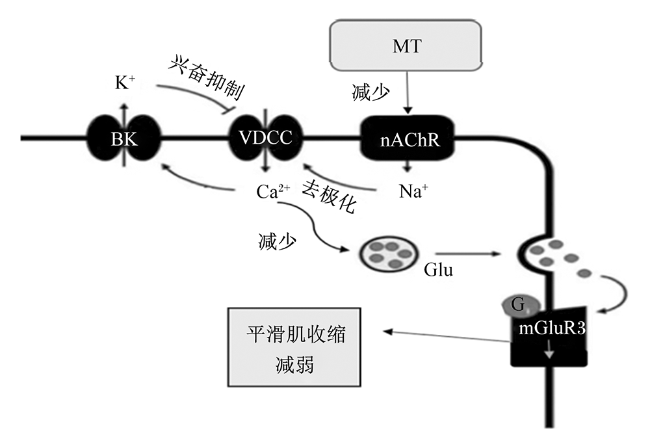
乙酰胆碱作为神经与肌肉之间的主要神经递质,可以激活瘤胃神经系统内平滑肌细胞或神经细胞上的受体引起平滑肌的收缩[26]。其中在牛的松果体细胞中发现,选择性刺激烟碱型乙酰胆碱受体可以诱导电压依赖性钙通道(voltage dependent calcium channel,VDCC)使Ca2+内流,释放谷氨酸(glutamic acid,Glu)激活胃肠蛋白偶联的代谢型谷氨酸受体,但与大鼠松果体细胞相反,胆碱能和谷氨酸能刺激并不抑制NE诱导的牛松果体细胞MT产生的增加(图2)[27-28]。且MT可以和Ca2+激活的钾离子(K+)通道之间相互作用,阻断烟碱通道从而引起胃肠舒张。Jo等[29]研究发现,MT还可以直接抑制烟碱型乙酰胆碱受体(nicotine acetylcholine receptor,nAChR),因为MT对去甲肾上腺素能神经末梢和肌下神经丛中的nAChR具有直接的结合亲和力,说明MT可能是胃肠道烟碱通道的局部调节剂。
图2 MT通过神经系统对平滑肌的调控

BK:BK离子通道BK channels;VDCC:电压依赖性钙通道 voltage dependent calcium channel;nAChR:烟碱型乙酰胆碱受体 nicotine acetylcholine receptor;Glu:谷氨酸 glutamic acid;mGluR3:代谢型谷氨酸受体亚型3 metabotropic glutamate receptor subtype 3;MT:褪黑素 melatonin。

Fig.2 Regulation of smooth muscle by melatonin nervous system[26]

3.3 DA受体

反刍动物的奖赏系统受中脑边缘的DA能系统进行调控,系统中MT相关cAMP的增加表明了MT对DA具有一定的调节作用。此外,已有研究表明,MT可以抑制下丘脑和视网膜中的DA释放,MT的抗兴奋作用可能是由于其抗氧化作用并显示出与谷氨酸相反的效果[30]。MT对下丘脑-垂体-肾上腺轴(hypothalamic-pituitary-adrenal axis,HPA)的日常节律在大多数哺乳动物物种中都有明显的昼夜节律,但在反刍动物中只有绵羊较为明显,且MT对绵羊促肾上腺皮质激素可产生直接抑制作用[31]。Aggarwal等[32]将MT注入到牛体内时,检测到血浆的去甲肾上腺素、DA和肾上腺素含量的增加,但肾上腺素含量的增加并不会一直持续。这说明由β-肾上腺素激素分泌的MT可能通过HPA或者血液循环作用于胃肠道上的肾上腺素受体,从而影响反刍动物胃肠道的运动性。同时,Walker等[33]研究表明,儿茶酚胺是由L-酪氨酸为前体物质转化得到去甲肾上腺素、肾上腺素和DA,并且能够对瘤胃发酵产生影响和影响动物的反刍行为。

4 MT通过内分泌系统对胃肠道的调控

内分泌系统中的各类激素传递化学信息调节胃肠道运动,而下丘脑-垂体轴作为内分泌系统的调控中枢,可释放胃肠道激素以及肽类物质,经血液循环可以到达瘤胃,来辅助调节瘤胃运动[34]

4.1 胃肠道激素

胃泌素和胆囊收缩素(cholecystokinin,CCK)也称胃泌素-胆囊收缩素。这2种激素会引起动物的反刍行为,所以对绵羊静脉注射胃泌素时会引起网胃-瘤胃紧张性收缩[35]。MT与胃泌素受体拮抗剂分子的结构相似性,MT2可以介导胃泌素和黏膜碳酸氢盐的分泌,从而使胃排空速度减慢并对胃肠道黏膜产生了保护作用[36]。在之前的研究中发现,CCK可能通过激活迷走神经元上的瘦素或内脏传入神经元向大脑摄食中枢传递抑制信号,使瘤胃收缩抑制,减少摄入量、提高瘤胃消化率[37-38]。此外,MT和色氨酸对胃黏膜表现出强大的保护作用,可以加速溃疡愈合,同时通过涉及肠胰反射和CCK的机制刺激胰腺外分泌功能[39],从而影响摄食行为甚至反刍的收缩频率。已有研究表明,MT或其前体L-色氨酸可以通过刺激CCK释放肽和激活十二指肠-胰腺反射来刺激CCK分泌,提高CCK含量、十二指肠液中胰腺α淀粉酶活性和小肠淀粉消化速率,MT主要是通过与肠内分泌细胞的CCK受体结合对瘤胃产生抑制作用[40-41]

4.2 肽类激素

肽类激素主要由下丘脑分泌,而下丘脑主要是通过促肾上腺皮质激素(adrenocorticotropic hormone,ACTH)和促甲状腺激素来调控胃肠运动,从而影响动物的摄食行为。Rhind等[42]研究发现,肽类激素胰岛素、PRL、瘦素分泌具有昼夜节律性且能够进入大脑控制反刍动物的摄食行为。

4.2.1 胰岛素

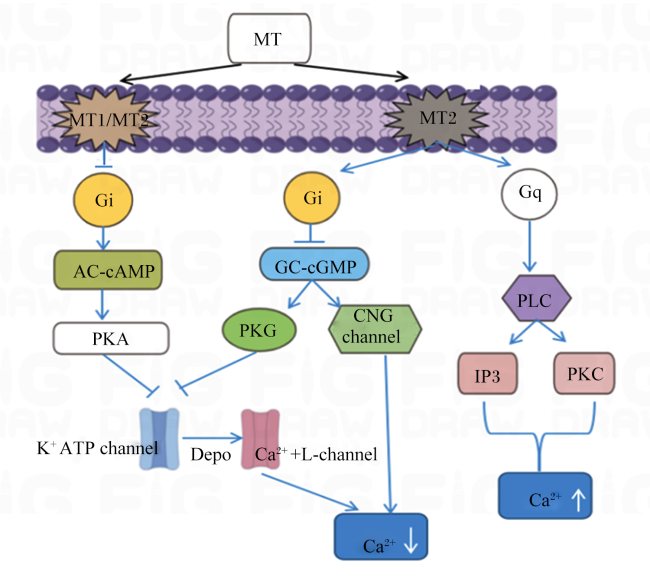
有研究发现,奶牛摄入了含有外源性MT的水后会增加血液中的胰岛素和葡萄糖含量,而MT可能会削弱晚间饲喂奶牛饱腹感,使奶牛消耗更多的饲粮[43]。这可能是因为MT可以通过受体MT1、MT2分别与Gi蛋白偶联,进而降低了腺苷酸环化酶(adenylyl cyclase,AC)和cAMP的水平,从而抑制环核苷酸系统(protein kinase A system,PKA)、GLP-1和葡萄糖依赖性促胰岛素多肽分泌,使胰岛素含量减少[44]。而MT2受体可以对NO诱导的可溶性鸟苷酸环化酶(soluble guanosine cyclase,sGC)产生负面影响,它激活环磷鸟苷(cyclic gmp,cGMP)和依赖性蛋白激酶G(protein kinase G,PKG),活化的PKG可以直接磷酸化,其中cGMP信号级联也靶向环核苷酸门控离子通道(cyclic nucleotide-gated channel,CNG)影响Ca2+的释放。由于MT对三磷酸肌醇(inositol triphosphate,IP3)的释放有刺激作用,所以MT1可以激活PLC/IP3通道释放大量Ca2+,增加了与致密核心大囊泡融合的促进胰岛素的分泌(图3)[45]。此外,在单胃动物和反刍动物中发现,MT和胰岛素之间可以相互作用,其主要是引起脂肪细胞对胰岛素的敏感性的增强,不仅如此,MT赋予了脂肪细胞响应胰岛素刺激合成瘦素的能力,在牛中胰岛素可以显著增强牛皮下脂肪组织中瘦素mRNA的表达[46-47]
图3 MT通过不同信号通路对胰岛素的影响

AC:腺苷酸环化酶 adenylate cyclase;cAMP:环磷酸腺苷 cyclie adenosine monophosphate;cGMP环磷酸鸟苷cyclic guanosine monophosphate;GC:鸟苷酸环化酶guanylatecyclase;IP3:三磷酸肌醇inositol wrisphosphate;MT1/MT2:褪黑素受体1/褪黑素受体2 melatonin receptor 1/melatonin receptor 2;PLC:磷酸酶C phospholipase C;PKA:蛋白激酶A protein kinase A;PKC:蛋白激酶C protein kinase C;PKG:蛋白激酶G protein kinase G;CNG channel:环核苷酸门控离子通道cyclic nucleotide-gated channel;MT:melatonin 褪黑素;K+ ATP channel: K+ ATP 通道;Ca+ L-channel: Ca+ L通道。

Fig.3 Effects of melatonin on insulin through different signal pathways[48]

4.2.2 PRL

已有研究表明,PRL受体存在于许多参与代谢和食物摄入的组织中,例如,下丘脑、小肠和脂肪组织等,因此PRL给药一定程度上可以影响哺乳动物的食物摄入量[49],其机制可能是由于催乳素释放肽(prolactin releasing peptide,PrRP)诱导饱腹感机制下丘脑催产素和促肾上腺皮质激素释放因子(corticotropinreleasing factor,CRF)信号通路来进行调控[50],而MT可以抑制促肾上腺皮质激素的不断合成,影响CRF通路减弱了PrRP诱导的摄食行为和胃排空。但当PrRP刺激的摄食行为达到峰值后,释放α-MSH使一种黑皮质素受体增加,刺激黑皮质信号,减弱食欲生成途径[51]。此外,下丘脑弓状核分泌的结节漏斗部DA神经元(tubero-infundibular dopamine,TIDA)分泌的DA也可通过下丘脑-垂体抑制PRL分泌,而MT通过刺激TIDA神经元对PRL分泌有抑制作用[52],说明MT很有可能同时控制TIDA神经元的活动和催乳素的分泌。此外,PRL被发现可以增加神经肽Y(neuropeptide Y,NPY)转录。NPY是包括绵羊在内的几个物种中有效的食欲刺激神经递质,它被认为在奶牛早期泌乳中增加采食量方面起重要作用,即PRL增加采食量以提供哺乳所需的营养[53]

4.2.3 瘦素

瘦素含量显示出与MT释放有相反的趋势,与季节节律有关,如绵羊能量平衡和食欲控制更有可能是由于光周期通过MT影响NPY和前黑皮质素(pro-opiomelanocortin,POMC)等基因在中枢效应的表达,而瘦素的一些中枢效应是由NPY和POMC介导的[54]。此外,Soppela等[55]研究发现,MT通过瘦素和胰岛素参与调节体重增加和季节性动物的能量平衡且葡萄糖和胰岛素在调节反刍动物瘦素表达中起关键作用。当MT与胰岛素相互作用时,它往往会减少绵羊脂肪组织和血浆中瘦素的分泌,但这些激素之间的相互作用可能具有物种特异性[56]。其中GABA能神经元可能是瘦素靶向的主要神经元,能直接受瘦素和葡萄糖的调节,同时,瘦素激活PrRP神经元以抑制食物摄入,这些因素反映了全身能量状态[57]。分泌瘦素、NPY和POMC的背侧下丘脑和分泌MT的下丘脑脑室旁核可能存在生理节律调节的功能联系。在目前的研究中发现,背侧下丘脑的GABA投射到下丘脑脑室旁核,可以作为一种神经回路,将背侧下丘脑传递到下丘脑脑室旁核进行昼夜节律调节[58]。此外,Szczesna等[59]研究发现,外源性瘦素能够在体外和体内以季节性依赖的方式刺激羊催乳素释放,说明了激素和激素之间可以相互作用,维持机体稳态。

5 MT对反刍动物生产性能和肠道微生物的影响及可能的机制

MT通过对神经系统和内分泌系统的调控,在一定程度上影响反刍动物的生产性能以及肠道微生物。

5.1 生产性能

当给反刍动物通过饲喂、注射或者皮下埋植MT时都可对生产性能以及幼畜的生长发育产生一定的影响。Zhang等[60]研究发现,MT1和MT2在整个羊哺乳期始终在垂体和乳腺中表达。MT可上调乳腺MT1和MT2的表达,从而直接影响β-酪蛋白的表达和细胞增殖,可以提高乳品质。MT植入可能通过减轻生殖季节性和增加胰岛素样生长因子-1(insulin-like growth factor 1,IGF-1)含量来影响乳成分[61],所以在某种程度上,MT可以影响泌乳奶牛、奶山羊的生产性能并能够缩短母畜哺乳期,保护母畜健康。但是,通过对牛耳后静脉注射MT发现,不注射的奶牛泌乳量比试验组要多,说明MT对产奶性能有一定抑制作用[62]。所以,有研究认为除了MT可以直接通过MT1、MT2直接下调泌乳奶山羊乳腺PRL的表达,DA也对PRL的分泌有一定的抑制作用,但MT作为强效自由基清除剂对DA神经元具有一定的保护作用,甚至可以通过强化结节漏斗部DA(tubero-infundibular dopamine,TIDA)抑制催乳素的分泌[63]。Yu等[64]研究发现,提高光照周期是引起MT分泌的主要因素,随着光照时间的延长,血液中MT的含量就越少,进而使胰岛素的分泌增强,促进脂肪的合成使其生产性能提高。此外,Zhang等[65]研究发现,用溴隐亭(一种对PRL的抑制剂,也是一种DA受体激动剂)处理山羊后,血清MT含量的增加,表明血液循环中PRL和MT之间存在联系,且MT含量的提高促进了毛发生长初期次级皮肤毛囊的发育,这种对毛囊活性的影响可归因于PRL含量的降低,这使得绒山羊皮肤中的RORα上调,因此,MT可以通过降低PRL含量来促进羊绒生长。MT不仅对成年反刍动物具有提高生长性能的作用,且对断奶前反刍动物的生长发育具有一定的保护作用。王梓颐等[66]在对断奶羔羊采用皮下埋植或者饲喂MT的方式时,虽可以让皮质醇的含量降低,缓解羔羊的断奶应激并且可以提高生长性能,但是对GH含量的影响并不显著;Abecia等[67]研究发现,对待产母畜进行皮下埋置MT处理后,羔羊体重和生长速度产生了影响,同时增加了奶中的脂肪含量,尤其是在泌乳末期。如果从妊娠第100天开始对母畜埋置MT,会发现羔羊从出生到断奶的存活率和生长率较高,可能是由高初乳质量、褐色脂肪组织和出生体重的增加介导的[68-69];相同的是,在犊牛的试验中也发现MT处理妊娠后期母牛所生的后代在第8和9周龄时,体重比未处理过的母畜所生的小牛有所增加[70]。除此之外,在干奶期开始时进行MT处理提高了奶牛在高温下的繁殖性能,不仅降低了繁殖疾病的发生率,还减少了妊娠早期的妊娠损失[71],因此,MT植入物作为一种治疗辅助剂具有潜力。

5.2 胃肠道微生物

瘤胃作为一个庞大的菌种资源库,包含大量的细菌、原虫和真菌构成,且易受动物日龄、品种以及饮食结构的影响。而瘤胃发酵是通过瘤胃的机械作用以及微生物共同完成的,为反刍动物提供了纤维素和果胶等营养物质[72]。且有研究表明,在反刍动物瘤胃中胃泌素、IGF-1、皮质醇等可以作用于微生物,促进微生物的生长代谢,部分微生物也能够分泌胰高血糖素和促性腺激素,说明激素可以双向介导宿主和肠道微生物[73-75]。研究发现,在瘤胃微生物中只有9%在分类操作单元(operational taxonomic unit,OTU)中具有明显的昼夜节律,主要是拟杆菌门(即普雷沃菌科、鼠李菌科和韦荣菌科)、变形菌门和厚壁菌门(乳球菌科),这与单胃动物猪的主要菌群是大致相同的[76-77]。用MT对瘤胃微生物进行体外培养发现,MT能提高瘤胃中菌群的丰度,且与普雷沃菌门相对丰度呈正相关,而与琥珀弧菌属、变形杆菌属相对丰度呈负相关;还可以改善奶牛的乳品质,这可能是因为MT降低了厚壁菌门与拟杆菌门的比值,和乳脂率呈负相关[78]。瘤胃微生物发酵产生的挥发性脂肪酸作为反刍动物80%的能量来源,其可以诱导胰腺β细胞分泌胰岛素,而MT的增加可能会减少胰岛素敏感组织中外周代谢物的摄取[79]
目前,大多数色氨酸高产菌株都是从大肠杆菌中构建的,从而合成L-色氨酸,产生MT。且肠道微生物可以刺激神经元和黏膜5-HT的释放,而色氨酸可以沿着微生物群-肠-脑轴传递信号影响胃肠动力并对脑长轴疾病具有重要意义[80]。色氨酸会与肠道细菌产生许多的色氨酸代谢物如吲哚类、色胺和粪臭素等,说明MT有可能会通过色氨酸的代谢通路对肠道微生物进行调控,其中吲哚类化合物和色氨酸可以介导结肠细胞中芳香烃受体,可以影响肠道弹性和对炎症刺激的反应[81-82]。Pan等[83]向绵羊十二指肠灌注5-HT,发现血液中的MT含量升高并且胃肠道黏膜都增加了MT的含量,证明了结肠中的微生物也参与MT的合成且还可以释放到循环中发挥其他作用。除此之外,在美国国家生物技术信息中心(National Center for Biotechnology Information,NCBI)的宏基因组学数据中鉴定了几种肠道细菌,其表达的序列与人类基因组中已知的MT结合位点具有24%~42%的同一性。其中包括革兰氏阴性、吲哚阴性产气肠杆菌的序列,且在MT存在的情况下,产气肠杆菌的会在培养基中表现出群集模式,说明产气杆菌对MT敏感且具有明显的昼夜节律模式[84]。Edrington等[85]研究中发现,牛在施用高剂量的MT,4 d期间大肠杆菌O157∶H7阳性的样本百分比下降。且有大量的研究表明,MT确实对革兰氏阴性菌有一定的抵抗作用[86],而且MT可以介导MT1、MT2、ROR和RZR受体在肠道组织中上调红系衍生的核因子2相关因子(Nrf2)的表达以及激活核因子-κB(nuclear factor kappa-B,NF-κB),保护肠道肌间神经元对肠道运动的调控以及减轻炎症过程,说明MT对肠道具有一定的保护作用[87]。因此,MT可以作用于肠道微生物群,这意味着它在许多生理条件下的作用是必不可少的,其影响在未来的研究中不应被忽视。

6 小结

肠嗜铬细胞分泌的MT可以影响神经系统和内分泌系统对含有多种神经元受体的胃肠道运动进行调节,从而影响反刍动物的摄食行为,并对胃肠道产生积极的保护作用;具有提高反刍动物生长性能、缓解应激、缩短哺乳期保护母畜的繁殖性能,是潜在的辅助生长治疗物。且MT可以影响瘤胃激素与胃肠道微生物相互作用,对胃肠道生理功能产生影响,但是MT和MT的前体物质对反刍动物胃肠道微生物具体作用机制还不清楚,暂时只能为消化道微生物的研究和改善消化道健康提供一些思路。而消化道中MT的代谢以及其进一步对消化道的反馈作用还有待进一步研究。
[1]
杨王浩, 赵淑琴, 闫美淋, 等. 松果体外褪黑素研究进展[J]. 动物医学进展, 2022, 43(4):74-81.

YANG Y H, ZHAO S Q, YAN M L, et al. progress of extracpineal melatonin[J]. Progress in Veterinary Medicine, 2022, 43(4):74-81. (in Chinese)

[2]
SIMONNEAUX V, RIBELAYGA C. Generation of the melatonin endocrine message in mammals:a review of the complex regulation of melatonin synthesis by norepinephrine,peptides,and other pineal transmitters[J]. Pharmacological Reviews, 2003, 55(2):325-395.

DOI

[3]
薛纯, 欧阳佳良, 陈培根, 等. 胃肠道褪黑素的合成及其对消化道微生物群体影响的研究进展[J]. 中国畜牧杂志, 2021, 57(1):41-48.

XUE C, OUYANG J L, CHE P G, et al. Research progress on melatonin synthesis in gastrointestinal tract and its effects on digestive microbial population[J]. Chinese Journal of Animal Science, 2021, 57(1):41-48. (in Chinese)

[4]
DO AMARAL F G, CIPOLLA-NETO J. A brief review about melatonin,a pineal hormone[J]. Archives of Endocrinology and Metabolism, 2018, 62(4):472-479.

DOI

[5]
NABAVI S M, NABAVI S F, SUREDA A, et al. Anti-inflammatory effects of melatonin:a mechanistic review[J]. Critical reviews in food science and nutrition, 2019,59 (Suppl.1):S4-S16.

[6]
FERLAZZO N, ANDOLINA G, CANNATA A, et al. Is melatonin the cornucopia of the 21st century?[J]. Antioxidants (Basel,Switzerland), 2020, 9(11):1088.

[7]
ZHAO D K, YU Y, SHEN Y, et al. Melatonin synthesis and function:evolutionary history in animals and plants[J]. Frontiers in Endocrinology, 2019, 10:249.

DOI

[8]
REITER R J, ROSALES-CORRAL S, SHARMA R. Circadian disruption,melatonin rhythm perturbations and their contributions to chaotic physiology[J]. Advances in Medical Sciences, 2020, 65(2):394-402.

DOI

[9]
MA H Z, KANG J, FAN W G, et al. ROR:nuclear receptor for melatonin or not?[J]. Molecules, 2021, 26(9):2693.

DOI

[10]
GUNATA M, PARLAKPINAR H, ACET H A. Melatonin:a review of its potential functions and effects on neurological diseases[J]. Revue neurologique, 2020, 176(3):148-165.

DOI

[11]
SINGH M, JADHAV H R. Melatonin:functions and ligands[J]. Drug Discovery Today, 2014, 19(9):1410-1418.

DOI

[12]
葛闻博. 褪黑素在绵羊附睾中的合成及其对附睾上皮细胞生理功能的调控研究[D]. 博士学位论文. 兰州: 甘肃农业大学, 2021:6-7.

GE W B. The synthesis of melatonin within epididymis and its regulation on epididymal epithelial cells physiological function in sheep[D]. Ph.D.Thesis. Lanzhou: Gansu Agricultural University, 2021:6-7. (in Chinese)

[13]
ACUÑA-CASTROVIEJO D, ESCAMES G, VENEGAS C, et al. Extrapineal melatonin:sources,regulation,and potential functions[J]. Cellular and Molecular Life Sciences, 2014, 71(16):2997-3025.

DOI

[14]
BUBENIK G A, HACKER R R, BROWN G M, et al. Melatonin concentrations in the luminal fluid,mucosa,and muscularis of the bovine and porcine gastrointestinal tract[J]. Journal of Pineal Research, 1999, 26(1):56-63.

DOI

[15]
BUBENIK G A. Thirty four years since the discovery of gastrointestinal melatonin[J]. Journal of Physiology and Pharmacology, 2008,59 (Suppl.2):33-51.

[16]
蒋玉婷, 李瑞, 罗文泽, 等. 褪黑素合成酶在绵羊胃中的表达[J]. 动物医学进展, 2019, 40(12):39-43.

JIANG Y T, LI R, LUO W Z, et al. Expression of melatonin and its relative synthases in sheep stomachs[J]. Progress in Veterinary Medicine, 2019, 40(12):39-43. (in Chinese)

[17]
欧阳佳良. 泌乳奶牛瘤胃内褪黑素的昼夜节律及其对瘤胃菌群结构的影响[D]. 硕士学位论文. 扬州: 扬州大学, 2020:18-20.

OUYANG J L. Diurnal variation of ruminal melatonin and the influence on rumen microorganisms in lactating cows[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2020:18-20. (in Chinese)

[18]
KOLBABOVÁ T, MALKEMPER E P, BARTOŠ L, et al. Effect of exposure to extremely low frequency magnetic fields on melatonin levels in calves is seasonally dependent[J]. Scientific Reports, 2015, 5:14206.

DOI PMID

[19]
PAL P K, SARKAR S, CHATTOPADHYAY A, et al. Enterochromaffin cells as the source of melatonin:key findings and functional relevance in mammals[J]. Melatonin Research, 2019, 2(4):61-82.

DOI

[20]
WILLIAMS E K, CHANG R B, STROCHLIC D E, et al. Sensory neurons that detect stretch and nutrients in the digestive system[J]. Cell, 2016, 166(1):209-221.

DOI PMID

[21]
KAYA F, VAN DUIN C T, VEENENDAAL G H, et al. Food intake and rumen motility in dwarf goats.Effects of so me serotonin receptor agonists and antagonists[J]. Veterinary Research Communications, 1992, 16(5):379-390.

DOI

[22]
MUKHERJEE S, MAITRA S K. Gut melatonin in vertebrates:chronobiology and physiology[J]. Frontiers in Endocrinology, 2015, 6:112.

[23]
BRZOZOWSKI T, JAWOREK J. Basic and clinical aspects of melatonin in the gastrointestinal tract.New advancements and future perspectives[J]. Current Pharmaceutical Design, 2014, 20(30):4785-4787.

DOI

[24]
LEMLEY C O, VONNAHME K A. Physiology and endocrinology SYMPOSIUM:alterations in uteroplacental hemodynamics during melatonin supplementation in sheep and cattle[J]. Journal of Animal Science, 2017, 95(5):2211-2221.

[25]
AHMED R, MAHAVADI S, AL-SHBOUL O, et al. Characterization of signaling pathways coupled to melatonin receptors in gastrointestinal smooth muscle[J]. Regulatory Peptides, 2013, 184:96-103.

DOI PMID

[26]
宋阳, 沈维军, 殷磊, 等. 反刍动物瘤胃运动机制、影响因素及其调控[J]. 动物营养学报, 2020, 32(7):2997-3004.

SONG Y, SHEN W J, YIN L, et al. Rumen movement mechanism,influencing factors and its regulation in ruminants[J]. Chinese Journal of Animal Nutrition, 2020, 32(7):2997-3004.

[27]
LUMSDEN S C, CLARKSON A N, CAKMAK Y O. Neuromodulation of the pineal gland via electrical stimulation of its sympathetic innervation pathway[J]. Frontiers in Neuroscience, 2020, 14:264.

DOI PMID

[28]
SCHOMERUS C, LAEDTKE E, OLCESE J, et al. Signal transduction and regulation of melatonin synthesis in bovine pinealocytes:impact of adrenergic,peptidergic and cholinergic stimuli[J]. Cell and Tissue Research, 2002, 309(3):417-428.

DOI

[29]
JO S H, LEE S H, KIM K T, et al. Melatonin inhibits nicotinic acetylcholine receptor functions in bovine chromaffin cells[J]. International Journal of Oral Biology, 2019, 44(2):50-54.

DOI

[30]
EMET M, OZCAN H, OZEL L, et al. A review of melatonin,its receptors and drugs[J]. The Eurasian Journal of Medicine, 2016, 48(2):135-141.

DOI

[31]
CHERGUI N, MORMEDE P, FOURY A, et al. Seasonal effects on plasma cortisol concentrations in the Bedouin buck:circadian studies and response to ACTH[J]. Animal, 2017, 11(3):445-451.

DOI

[32]
AGGARWAL A, UPADHYAY R C, SINGH S V, et al. Adrenal-thyroid pineal interaction and effect of exogenous melatonin during summer in crossbred cattle[J]. Indian Journal of Animal Sciences, 2005, 75(8):915-921.

[33]
WALKER C E, DROUILLARD J S. Effects of catecholamines on gut microflora and potential for beta-adrenergic agonists to impact ruminal fermentation[J]. The Open Agriculture Journal, 2012, 6:57-66.

DOI

[34]
CLARKE I J. Interface between metabolic balance and reproduction in ruminants:focus on the hypothalamus and pituitary[J]. Hormones and Behavior, 2014, 66(1):15-40.

DOI

[35]
ONAGA T, SUGITA A, WAKAIKI R, et al. Localization of CCK-1R in the omasum and role of CCK in the regulation of omasal contractions in sheep[J]. Domestic Animal Endocrinology, 2008, 35(2):231-244.

DOI PMID

[36]
RIVARA S, PALA D, BEDINI A, et al. Therapeutic uses of melatonin and melatonin derivatives:a patent review (2012-2014)[J]. Expert Opinion on Therapeutic Patents,2015, 25(4):425-441.

DOI

[37]
BANG C S, YANG Y J, BAIK G H. Melatonin for the treatment of gastroesophageal reflux disease;protocol for a systematic review and Meta-analysis[J]. Medicine, 2019, 98(4):e14241.

DOI

[38]
ALLEN M. Drives and limits to feed intake in ruminants[J]. Animal Production Science, 2014, 54(10):1513-1524.

DOI

[39]
YAO K, FANG J, YIN Y L, et al. Tryptophan metabolism in animals:important roles in nutrition and health[J]. Frontiers in Bioscience (Scholar Edition), 2011, 3(1):286-297.

[40]
LEJA-SZPAK A, JAWOREK J, NAWROT-PORABKA K, et al. Modulation of pancreatic enzyme secretion by melatonin and its precursor;L-tryptophan. Role of CCK and afferent nerves[J]. Journal of Physiology and Pharmacology:an Official Journal of the Polish Physiological Society, 2004, 55 Suppl 2:33-46.

[41]
LEE S B, LEE K W, WANG T, et al. Administration of encapsulated L-tryptophan improves duodenal starch digestion and increases gastrointestinal hormones secretions in beef cattle[J]. Asian-Australasian Journal of Animal Sciences, 2020, 33(1):91-99.

DOI

[42]
RHIND S M, ARCHER Z A, ADAM C L. Seasonality of food intake in ruminants:recent developments in understanding[J]. Nutrition Research Reviews, 2002, 15(1):43-65.

DOI

[43]
NIKKHAH A. Bioscience of ruminant intake evolution:feeding time models[J]. Advances in Bioscience and Biotechnology, 2011, 2(4):271-274.

DOI

[44]
裴江兰, 习瓒娜, 欧阳佳良, 等. 褪黑素调控动物消化道上皮养分吸收代谢机制的研究进展[J]. 生命科学研究, 2022, 26(3):224-228,263.

PEI J L, XI Z N, OUYANG J L, et al. Research progress in mechanism of regulation of nutrient uptake and metabolism by melatonin in animal digestive tract epithelium[J]. Life Science Research, 2022, 26(3):224-228,263. (in Chinese)

[45]
NISHIYAMA K, HIRAI K. The melatonin agonist ramelteon induces duration-dependent clock gene expression through cAMP signaling in pancreatic INS-1 β-cells[J]. PLoS One, 2014, 9(7):e102073.

DOI

[46]
ALONSO-VALE M I C, ANDREOTTI S, PERES S B, et al. Melatonin enhances leptin expression by rat adipocytes in the presence of insulin[J]. American Journal of Physiology Endocrinology and Metabolism, 2005, 288(4):E805-E812.

DOI

[47]
SZCZESNA M, ZIEBA D A, KLOCEK-GORKA B, et al. Interactive in vitro effect of prolactin,growth hormone and season on leptin secretion by ovine adipose tissue[J]. Small Ruminant Research, 2011, 100(2/3):177-183.

DOI

[48]
SHARMA S, SINGH H, AHMAD N, et al. The role of melatonin in diabetes:therapeutic implications[J]. Archives of Endocrinology and Metabolism, 2015, 59(5):391-399.

DOI

[49]
YAMASHITA M, TAKAYANAGI Y, YOSHIDA M, et al. Involvement of prolactin-releasing peptide in the activation of oxytocin neurones in response to food intake[J]. Journal of neuroendocrinology, 2013, 25(5):455-465.

DOI PMID

[50]
LAWRENCE C B, ELLACOTT K L J, LUCKMAN S M. PRL-releasing peptide reduces food intake and may mediate satiety signaling[J]. Endocrinology, 2002, 143(2):360-367.

PMID

[51]
YAYOU K I, KITAGAWA S, ITO S, et al. Effect of oxytocin,prolactin-releasing peptide,or corticotropin-releasing hormone on feeding behavior in steers[J]. General and Comparative Endocrinology, 2011, 174(3):287-291.

DOI

[52]
LI H Y, WEI J Y, MA F T, et al. Melatonin modulates lactation by regulating prolactin secretion via tuberoinfundibular dopaminergic neurons in the hypothalamus-pituitary system[J]. Current Protein & Peptide Science, 2020, 21(8):744-750.

[53]
LACASSE P, OLLIER S, LOLLIVIER V, et al. New insights into the importance of prolactin in dairy ruminants[J]. Journal of Dairy Science, 2016, 99(1):864-874.

DOI PMID

[54]
KIRSZ K, SZCZESNA M, MOLIK E, et al. Seasonal changes in the interactions among leptin,ghrelin,and orexin in sheep[J]. Journal of Animal Science, 2012, 90(8):2524-2531.

DOI

[55]
SOPPELA P, SAARELA S, HEISKARI U, et al. The effects of wintertime undernutrition on plasma leptin and insulin levels in an arctic ruminant,the reindeer[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2008, 149(4):613-621.

DOI

[56]
SZCZESNA M, ZIEBA D A, KLOCEK-GORKA B, et al. Interactive in vitro effect of prolactin,growth hormone and season on leptin secretion by ovine adipose tissue[J]. Small Ruminant Research, 2011, 100(2/3):177-183.

DOI

[57]
D’SOUZA A M, NEUMANN U H, GLAVAS M M, et al. The glucoregulatory actions of leptin[J]. Molecular Metabolism, 2017, 6(9):1052-1065.

DOI PMID

[58]
OTGON-UUL Z, SUYAMA S, ONODERA H, et al. Optogenetic activation of leptin-and glucose-regulated GABAergic neurons in dorsomedial hypothalamus promotes food intake via inhibitory synaptic transmission to paraventricular nucleus of hypothalamus[J]. Molecular Metabolism, 2016, 5(8):709-715.

DOI

[59]
SZCZESNA M, KIRSZ K, MISZTAL T, et al. The effects of leptin on plasma concentrations of prolactin, growth hormone,and melatonin vary depending on the stage of pregnancy in sheep[J]. Journal of Animal Science, 2018, 96(8):3348-3357.

[60]
ZHANG W L, CHEN J X, ZHAO Y X, et al. The inhibitory effect of melatonin on mammary function of lactating dairy goats[J]. Biology of Reproduction, 2019, 100(2):455-467.

DOI

[61]
EL-MOKADEM M Y, EL-DIN A N M N, RAMADAN T A, et al. The role of melatonin implantation and the associated effect of insulin-like growth factor-1 on milk composition of Barki ewes[J]. Animal Production Science, 2021, 62(2):137-141.

DOI

[62]
AULDIST M J, TURNER S A, MCMAHON C D, et al. Effects of melatonin on the yield and composition of milk from grazing dairy cows in New Zealand[J]. Journal of Dairy Research, 2007, 74(1):52-57.

PMID

[63]
CHU Y S, SHIEH K R, YUAN Z F, et al. Stimulatory and entraining effect of melatonin on tuberoinfundibular dopaminergic neuron activity and inhibition on prolactin secretion[J]. Journal of Pineal Research, 2000, 28(4):219-226.

DOI PMID

[64]
YU Y, QIU J Y, CAO J C, et al. Effects of prolonged photoperiod on growth performance,serum lipids and meat quality of Jinjiang cattle in winter[J]. Animal Bioscience, 2021, 34(9):1569-1578.

DOI

[65]
ZHANG L C, DUAN C H, GUO Y X, et al. Inhibition of prolactin promotes secondary skin follicle activation in cashmere goats[J]. Journal of Animal Science, 2021, 99(4):skab079.

DOI

[66]
王梓颐, 徐尚, 任艳玲, 等. 褪黑素对绵羊生长性能、断奶应激及免疫蛋白的影响[J]. 中国畜牧杂志, 2022, 58(4):195-200.

WANG Z Y, XU S, REN Y L, et al. Effects of melatonin on growth performance,weaning stress and immune proteins in sheep[J]. Chinese Journal of Animal Science, 2022, 58(4):195-200. (in Chinese)

[67]
ABECIA J A, LUIS S, CANTO F. Implanting melatonin at lambing enhances lamb growth and maintains high fat content in milk[J]. Veterinary Research Communications, 2021, 45(4):181-188.

DOI PMID

[68]
DAVIS R, GREEN J M, ABECIA J A. 31. Field trials of the use of melatonin implants during pregnancy as a tool to improve lamb performances[J]. Animal-science proceedings, 2021, 12(1):21.

DOI

[69]
SALES F, PARRAGUEZ G V, MCCOARD S, et al. Fetal brown fat deposition is increased by melatonin implants in sheep[J]. Journal of Animal Science, 2017,95 (Suppl.4):152-153.

[70]
GARCIA-ISPIERTO I, ABDELFATAH A, LÓPEZ-GATIUS F. Melatonin treatment at dry-off improves reproductive performance postpartum in high-producing dairy cows under heat stress conditions[J]. Reproduction in Domestic Animals, 2013, 48(4):577-583.

DOI

[71]
BROCKUS K E, HART C G, FLEMING B O, et al. Effects of supplementing Holstein heifers with dietary melatonin during late gestation on growth and cardiovascular measurements of their offspring[J]. Reproduction in Domestic Animals, 2016, 51(2):240-247.

DOI PMID

[72]
ÖZTÜRK H, GÜR G. Rumen physiology:microorganisms,fermentation and manipulation[J]. Ankara Üniversitesi Veteriner Fakültesi Dergisi, 2021, 68(4):423-434.

[73]
AGARWAL M K. Receptors for mammalian steroid hormones in microbes and plants[J]. FEBS Letters, 1993, 322(3):207-210.

PMID

[74]
THACKRAY V G. Sex,microbes,and polycystic ovary syndrome[J]. Trends in Endocrinology & Metabolism, 2019, 30(1):54-65.

[75]
VOM STEEG L G, KLEIN S L. Sex steroids mediate bidirectional interactions between hosts and microbes[J]. Hormones and Behavior, 2017, 88:45-51.

DOI PMID

[76]
张卓, 黄金秀, 杨飞云, 等. 早期粪菌移植对仔猪肠道发育、肠道菌群组成和肠道激素分泌的影响[J]. 动物营养学报, 2021, 33(7):3745-3758.

ZHANG Z, HUANG J X, YANG F Y, et al. Effects of early fecal microbiota transplantation on intestinal development,intestinal microbiota composition and intestinal hormone secretion of piglets[J]. Chinese Journal of Animal Nutrition, 2021, 33(7):3745-3758. (in Chinese)

[77]
OUYANG J L, WANG M Z, BU D P, et al. Ruminal microbes exhibit a robust circadian rhythm and are sensitive to melatonin[J]. Frontiers in Nutrition, 2021, 8:760578.

DOI

[78]
YAO S Y, WU H, MA H, et al. Effects of rumen bypass melatonin feeding (RBMF) on milk quality and mastitis of Holstein cows[J]. PeerJ, 2020, 8:e9147.

DOI

[79]
NIKKHAH A. Eating time modulations of physiology and health: life lessons from human and ruminant models[J]. Iranian Journal of Basic Medical Sciences, 2012, 15(4):891-899.

PMID

[80]
NIU H, LI R R, LIANG Q F, et al. Metabolic engineering for improving L-tryptophan production in Escherichia coli[J]. Journal of Industrial Microbiology and Biotechnology, 2019, 46(1):55-65.

DOI

[81]
WIKOFF W R, ANFORA A T, LIU J, et al. Metabolomics analysis reveals large effects of gut microflora on mammalian blood metabolites[J]. Proceedings of the National Academy of Sciences of the United States of America, 2009, 106(10):3698-3703.

DOI PMID

[82]
PAULOSE J K, CASSONE V M. The melatonin-sensitive circadian clock of the enteric bacterium Enterobacter aerogenes[J]. Gut Microbes, 2016, 7(5):424-427.

DOI

[83]
PAN J, LI F M, WANG C D, et al. Effects of duodenal 5-hydroxytryptophan perfusion on melatonin synthesis in GI tract of sheep[J]. Molecules, 2021, 26(17):5275.

DOI

[84]
TEKBAS O F, OGUR R, KORKMAZ A, et al. Melatonin as an antibiotic: new insights into the actions of this ubiquitous molecule[J]. Journal of Pineal Research, 2008, 44(2):222-226.

DOI PMID

[85]
EDRINGTON T S, CALLAWAY T R, HALLFORD D M, et al. Effects of exogenous melatonin and tryptophan on fecal shedding of E.coli O157∶H7 in cattle[J]. Microbial Ecology, 2008, 55(3):553-560.

DOI

[86]
SRINIVASAN V, MOHAMED M, KATO H. Melatonin in bacterial and viral infections with focus on sepsis:a review[J]. Recent Patents on Endocrine Metabolic & Immune Drug Discovery, 2012, 6(1):30-39.

[87]
MA N, ZHANG J, REITER R J, et al. Melatonin mediates mucosal immune cells,microbial metabolism,and rhythm crosstalk:a therapeutic target to reduce intestinal inflammation[J]. Medicinal Research Reviews, 2020, 40(2):606-632.

DOI

文章导航

/