综述

表没食子儿茶素没食子酸酯对脂质代谢的调控机制及其在畜禽生产中的应用

  • 黄超群 ,
  • 骆曜骏 ,
  • 王新霞 , *
展开
  • 浙江大学动物科学学院,教育部动物分子营养学重点实验室,农业农村部(华东)动物营养与饲料重点实验室,浙江省饲料与动物营养重点实验室,杭州 310058
* 王新霞,教授,博士生导师,E-mail:

黄超群(1998—),男,河南信阳人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

收稿日期: 2022-06-07

  网络出版日期: 2023-01-11

基金资助

国家自然科学基金区域创新发展联合基金(U21A20249)

浙江省重点研发计划项目(2021C02008)

Regulation Mechanism of Epigallocatechin Gallate on Lipid Metabolism and Its Application in Livestock and Poultry Production

  • HUANG Chaoqun ,
  • LUO Yaojun ,
  • WANG Xinxia , *
Expand
  • Key Laboratory of Animal Feed and Nutrition of Zhejiang Province, Key Laboratory of Animal Nutrition and Feed Science (Eastern of China), Ministry of Agriculture and Rural Affairs, Key Laboratory of Molecular Animal Nutrition (Zhejiang University), Ministry of Education, College of Animal Sciences, Zhejiang University, Hangzhou 310058, China
* professor, E-mail:

Received date: 2022-06-07

  Online published: 2023-01-11

摘要

表没食子儿茶素没食子酸酯(EGCG)是茶叶中的主要成分,具有调控脂肪组织稳态、调节机体糖、脂代谢、缓解非酒精性脂肪肝等多种生物学功能,可作为一种天然的饲料添加剂用以提高畜禽的生产性能,具有广泛的利用价值和应用前景。为此,本文综述了EGCG对脂质代谢的调控机制及其在畜禽生产中的应用,以便为更好地将EGCG应用于畜牧领域提供参考。

本文引用格式

黄超群 , 骆曜骏 , 王新霞 . 表没食子儿茶素没食子酸酯对脂质代谢的调控机制及其在畜禽生产中的应用[J]. 动物营养学报, 2023 , 35(1) : 86 -98 . DOI: 10.3969/j.issn.1006-267x.2023.01.010

Abstract

Epigallocatechin gallate (EGCG), the most abundant flavonoid in green tea, possesses multiple biological functions, including regulating adipose tissue homeostasis, improving glucose and lipid metabolism, and alleviating non-alcoholic fatty liver disease. EGCG can be applied as natural feed additives to increase the productivity of major livestock species, and thus have considerable development and utilization value and extensive application prospects. This article mainly reviews the regulatory mechanism of EGCG on lipid metabolism as well as its application in animal production, aiming at providing references for better application of EGCG in the field of animal husbandry.

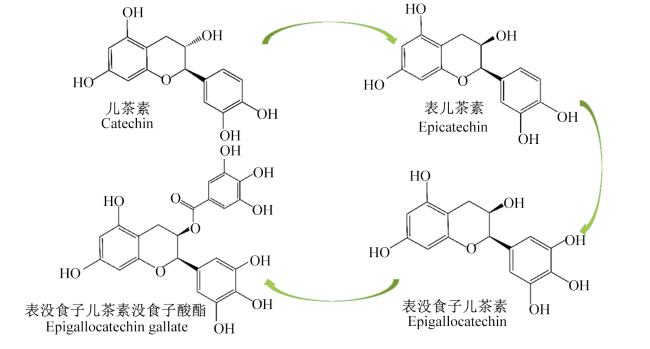
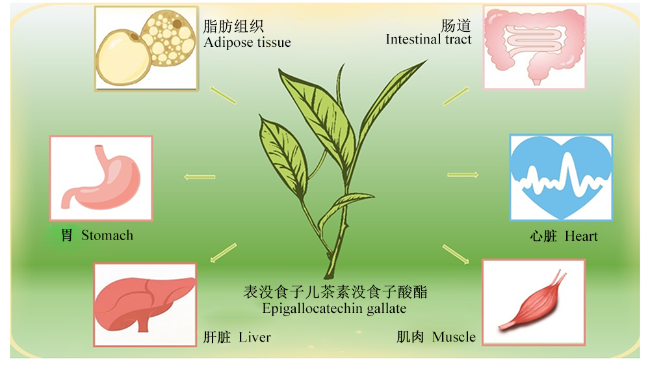
表没食子儿茶素没食子酸酯(epigallocatechin gallate,EGCG)的分子式为C22H18O11,相对分子质量为458,属于儿茶素(catechin)(图1),是绿茶茶多酚的主要组成成分[1]。EGCG在绿茶中的含量最高,每100 g干茶叶中含量可达7 380 mg。此外,李子、洋葱、榛子、核桃、角豆等多种植物中也可检测到少量EGCG的存在,如每100 g角豆粉中EGCG的含量约为109 mg[2-3]。研究表明,EGCG具有改善脂肪组织稳态[4]、抑制癌细胞增殖[5]、缓解非酒精性脂肪肝(non-alcoholic fatty liver disease,NAFLD)[6]、影响肠道药物代谢酶的表达[7]、缓解心肌肥大[8]、提高肌肉组织胰岛素敏感性等多种生物学功能(图2)[9-10]。本文就国内外关于EGCG对脂质代谢的调控机制及其在畜禽生产中的应用作一综述,旨在为EGCG在畜牧生产中的研究和应用提供参考。
图1 表没食子儿茶素没食子酸酯与其衍生物的关系

Fig.1 Relationship between EGCG and its derivates[1]

图2 EGCG对机体多种组织和器官产生的影响

Fig.2 Effects of EGCG on tissues and organs of body[4-10]

1 EGCG对脂质代谢的调控机制

1.1 调控脂肪组织稳态
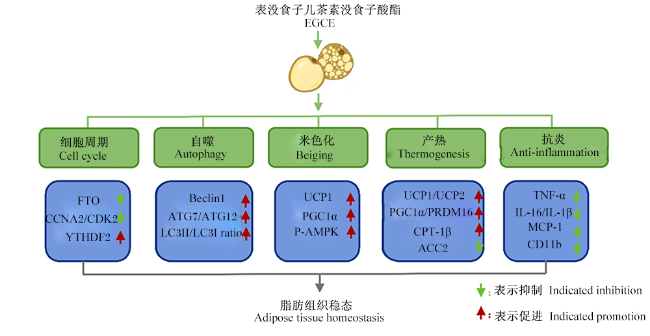
哺乳动物脂肪组织具有高度可塑性,可以通过调控自身大小及功能积极响应机体内外环境变化,例如营养状况、环境温度等[11]。脂肪组织中的白色脂肪(white fat)和棕色与米色脂肪(brown and beige fat)在脂肪的储存和动员、全身能量稳态的维持中发挥核心作用,它们的代谢失调与功能障碍和机体代谢紊乱紧密相连[12]。最近的研究发现,EGCG可以通过多种途径改善脂肪组织稳态(图3)。
图3 EGCG调控脂肪组织稳态的机制

FTO:肥胖相关蛋白 fat mass and obesity-associated protein;CCNA2:细胞周期蛋白A2 cell cycle regulator cyclin A2;CDK2:细胞周期蛋白依赖性激酶2 cyclin dependent kinase 2;YTHDF2:YTH结构域家族蛋白2 YTH N6-methyladenosine RNA binding protein 2;Beclin1:自噬相关蛋白 1 autophagy related protein beclin 1;ATG7:自噬相关蛋白7 autophagy related protein 7;ATG12:自噬相关蛋白12 autophagy related protein 12;LC3:微管相关蛋白1A/1B-轻链 3 microtubule-associated proteins 1A/1B light chain 3;UCP1:解耦联蛋白1 uncoupling protein 1;PGC1α:过氧化物酶体增殖物激活受体γ共激活剂1-α peroxisome proliferator-activated receptor-γ coactivator 1-α;P-AMPK:磷酸化腺苷酸活化蛋白激酶 phosphorylated AMP-activated protein kinase;UCP2:解耦联蛋白2 uncoupling protein 2;PRDM16:PR结构域蛋白16 PR domain-containing 16;CPT-1β:肉碱棕榈酰转移酶-1β carnitine palmitoyltransferase-1β;ACC2:乙酰辅酶A羧化酶2 acetyl-CoA carboxylase 2;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-6:白细胞介素-6 interleukin-6;IL-1β:白细胞介素-1β interleukin-1β;MCP-1:单核细胞趋化蛋白-1 monocyte chemotactic protein-1;CD11b:白细胞分化抗原11b cluster of differentiation 11b。

Fig.3 Mechanisms by which EGCG regulates adipose tissue homeostasis[4,13-16]

1.1.1 调控脂肪细胞增殖分化

Chan等[17]发现,EGCG能以剂量依赖性的方式抑制3T3-L1细胞的增殖,并且可以通过阻断细胞周期进程、下调成脂关键基因表达进而抑制成脂分化。Wu等[4]进一步对EGCG阻断细胞周期进程的机制研究表明,EGCG是通过降低去甲基化酶肥胖相关蛋白(fat mass and obesity-associated protein,FTO)的蛋白稳定性,进而影响细胞整体和细胞周期关键基因mRNA m6A水平,并以依赖于YTH结构域家族蛋白2(YTH N6-methyladenosine RNA binding protein 2,YTHDF2)的方式降低了正调控细胞周期的细胞周期蛋白依赖性激酶2(cyclin dependent kinase 2,CDK2)、细胞周期蛋白A2(cell cycle regulator cyclin A2,CCNA2)、细胞周期素D1(cyclin D1,CCND1)的蛋白表达,从而阻断了细胞周期进程并最终抑制脂肪细胞分化,同时,EGCG处理还提高了负调控细胞周期的视网膜母细胞瘤基因(retinoblastomal,RB1)、细胞周期检查点蛋白p27(p27Kip1,p27)、细胞周期抑制因子p21(cell cycle inhibitor p21,p21)的蛋白表达[4],但这种影响是否也依赖于FTO介导的去甲基化功能有待探索。

1.1.2 调控脂肪组织细胞产热

与白色脂肪细胞相比,棕色和米色脂肪细胞有非常高的脂肪酸氧化速率,可以将能量以热的方式耗散掉,这一作用依赖于解耦联蛋白1(uncoupling protein 1,UCP1)。越来越多的研究表明,增加米色脂肪的生成对人体的代谢健康大有裨益,例如,选择性激活米色脂肪可改善全身葡萄糖耐量和胰岛素敏感性[18]。因此,调控棕色和米色脂肪细胞的数量和功能是调控机体能量代谢的策略之一,并有望被应用于肥胖和糖尿病等代谢性疾病的治疗[19-20]。最近的研究表明,EGCG抵抗肥胖的效果可能与EGCG调控棕色和米色脂肪的功能有关。具体而言,在源自腹股沟白色脂肪组织(inguinal white adipose tissue,iWAT)的前体脂肪细胞中表达水平较低的UCP1,却在EGCG处理后显著上调。不仅如此,EGCG还促进了前体脂肪细胞线粒体的生物发生并诱导了其他重要产热基因的表达,如DNA断裂因子45样效应因子α(cell-death-inducing DNA-fragmentation-factor-like effector-a,Cidea)、Ⅱ型脱碘酶(deiodinase type 2,DIO2)、转录因子早期B细胞因子2(recombinant early B-cell factor 2,EBF2)等[13]。Lee等[14]研究结果则表明,与对照组相比,饲粮中添加EGCG会升高小鼠体温并增加棕色脂肪组织线粒体DNA(mitochondrial DNA,mtDNA)含量,同时还会上调棕色脂肪组织产热相关基因,如UCP1的表达,而乙酰辅酶A羧化酶2(acetyl CoA carboxylase 2,ACC2)的表达则有所下降(图3)。这些结果表明,EGCG抵抗肥胖的效果可能与EGCG靶向脂肪细胞促进产热有关。

1.1.3 调控脂肪组织细胞自噬

众所周知,AMP依赖的蛋白激酶(AMP-dependent protein kinase,AMPK)在脂肪组织能量代谢中扮演重要角色,能调节白色脂肪细胞的分化、能量代谢、线粒体生物合成等,并在棕色脂肪组织的发育、维持棕色脂肪组织线粒体功能和白色脂肪组织褐变中起着至关重要的作用[21-22]。研究表明,EGCG可以增强肥胖小鼠棕色和皮下与附睾白色脂肪组织乃至肌肉组织中的AMPK活性,因此,EGCG抗肥胖的作用可能与激活各种组织中的AMPK有关,然而其中的分子机制尚未完全阐明[14,23-24]。Choi等[15]进一步研究发现,EGCG通过激活AMPK信号通路增加了白色脂肪组织细胞中的自噬通量,并促进了性腺旁白色脂肪组织(gonadal white adipose tissue,gWAT)细胞中自噬相关基因7(autophagy related 7,Atg7)、自噬相关基因12(autophagy related 12,Atg12)以及Beclin1形成所必需的分子的基因表达。并且,脂肪细胞特异性敲除Beclin1减弱了EGCG对肥胖小鼠体重和葡萄糖耐量的影响。但由于Beclin1也参与调节细胞的死亡和凋亡过程[25],因此,EGCG抗肥胖的作用是否还与脂肪细胞的死亡和凋亡过程有关有待研究。

1.2 调节血糖血脂

多项研究表明,EGCG能作用于多种胰岛素敏感组织从而产生降血糖、缓解胰岛素抵抗等功效。例如,EGCG可以通过缓解游离脂肪酸导致的氧化应激、激活骨骼肌和脂肪组织中的AMPK通路并降低血清中的脂质含量来提高胰岛素抵抗模型大鼠的胰岛素敏感性[9,26]。此外,EGCG还可通过激活蛋白激酶C(protein kinase C,PKC)、磷脂酰肌醇3-激酶(phosphatidylinositol-3-kinase,PI3K)/蛋白激酶B(protein kinase B,AKT)信号通路、丝裂原活化蛋白激酶(mitogen-activated proteinkinases,MAPK)和细胞外信号调节激酶1/2通路(extracellular signal-regulated kinase 1/2,ERK1/2)来促进胰岛素作用下组织细胞对于葡萄糖的摄取[27-28]。Cao等[29]同样发现,Wistar大鼠饲喂含0.1%~0.2%绿茶提取物的高果糖饲粮6周后,与对照组相比,肝脏和肌肉组织中胰岛素信号通路和葡萄糖转运蛋白家族相关基因的表达水平显著增加。Nishiumi等[30]则发现,饲喂高脂饲粮的同时向饮水中补充绿茶或红茶可促进C57BL/6J小鼠肌肉中葡萄糖转运载体4(glucose transporter 4,GLUT4)的表达和转位,进而缓解高血糖症并抑制白色脂肪组织的脂肪沉积,这与Ueda-Wakagi等[31]的研究结果相符。研究还表明,EGCG可以通过与肠道内α-淀粉酶(α-amylase)和α-葡萄糖苷酶(α-glucosidase)的活性位点结合,在体外和体内抑制淀粉水解,进而降低小鼠进食后的血糖水平[7,32]。值得注意的是,EGCG对于葡萄糖苷酶的抑制作用是非竞争性且可逆的,并不会减少酶的数量,而除EGCG外,多种绿茶黄酮醇对葡萄糖苷酶也具有抑制作用[28,33-34]。不仅如此,EGCG还可以抑制高脂饲粮和链脲佐菌素(streptozocin)诱导的糖尿病小鼠肝脏中葡萄糖-6-磷酸酶(glucose-6-phosphatase,G-6-pase)、固醇调节元件结合蛋白-1C(sterol regulatory element binding protein-1C,SREBP-1C)、脂肪酸合成酶(fatty acid synthetase,FAS)等糖异生和脂代谢途径中关键蛋白的表达,并激活孕甾烷X受体/组成型雄甾烷受体(PXR/CAR)和肝脏与小肠中一系列药物代谢酶的表达,进而起到提高胰岛素敏感性、缓解糖尿病的作用[7]。总而言之,饲粮中补充一定量的EGCG可作为预防和治疗2型糖尿病(T2DM)的有效措施。

1.3 缓解NAFLD

NAFLD不仅是一个连续的疾病谱[35-36],近年来在基础和临床上的研究表明,NAFLD还是一种涉及全身代谢紊乱的疾病,其发病机制与肥胖和胰岛素抵抗密切相关,且互为因果,并提出采用“代谢相关脂肪性肝病”(metabolic associated fatty liver disease,MAFLD)取代现有NAFLD命名的提议,以凸显代谢紊乱在该疾病发展中的重要性[37-40]。具体而言,机体除肝脏外的代谢及非代谢器官,包括肠道微生物、神经环路等引起的代谢障碍会导致NAFLD的发生和进展。此外,随着多组学技术的兴起和发展,NAFLD/非酒精性脂肪肝炎(NASH)的疾病生理及发病机制也从初期的“双重打击”学说延伸到当下的“多重打击”学说,从而极大地加深了人们对NAFLD的认识和理解,然而,目前针对该疾病尚没有获批准的药物和有效的治疗手段[35,41]。多年来基于啮齿动物的研究表明,EGCG在多方面展现了治疗NAFLD的巨大潜力,其功效包括促进脂质和葡萄糖代谢、抗脂质过氧化、降低炎症水平、改善肠道菌群失调和肠道免疫系统等[42-43],相关机制及治疗效果如表1所示。
表1 EGCG在治疗NAFLD中的作用

Table 1 Role of EGCG in treatment of NAFLD

序号
No.
动物模型
Animal model
试验周期
Experimental
period/周
饲喂剂量和方式
Feeding dose and
method
主要试验结果
Main experimental
results
参考文献
Reference
1 高脂饲粮喂养的雄性
C57BL/6J小鼠
16 每千克饲粮添加
3.2 g EGCG
(1)体重(33%~41%)↓;
(2)肝脏重量↓;
(3)肝脏甘油三酯含量(60%)↓;
(4)肠系膜脂肪重量↓;
(5)单核细胞趋化蛋白1表达↓、谷丙
转氨酶活性(67%)↓;
(6)血糖(25%)含量↓、胰岛素抵抗指数↓。
[42]
序号
No.
动物模型
Animal model
试验周期
Experimental
period/周
饲喂剂量和方式
Feeding dose and
method
主要试验结果
Main experimental
results
参考文献
Reference
2 高脂饲粮喂养的雄性
C57BL/6J小鼠
17 每千克饲粮添加
3.2 g EGCG
(1)肝脏甘油三酯含量(9%)↓;
(2)体重(33%~41%)↓、肠系膜
脂肪重量↓;
(3)血糖含量(12.3%)↓、血浆胰
岛素含量↓、胰岛素抵抗
指数(42.6%)↓;
(4)白细胞介素-6表达↓、粒细胞集
落刺激因子表达↓
[43]
3 高脂饲粮喂养的
雄性Swiss小鼠
16 每天灌胃0.1 mL
每千克体重50 mg
剂量的EGCG
(1)胰岛素抵抗指数↓、胰岛素信号
通路丝氨酸/苏氨酸激酶、胰岛
素受体底物-1表达↑;
(2)线粒体复合物Ⅱ、Ⅲ、Ⅳ和
苹果酸脱氢酶活性↑;
(3)对肿瘤坏死因子-α、白细胞
介素-6含量没有显著影响
[44]
4 高脂饲粮喂养的雄性
C57BL/6J小鼠
16 每千克饲粮添加
3.2 g EGCG
(1)体重(9%)↓、对腹膜后与附睾
脂肪组织没有显著影响;
(2)中链酰基辅酶A脱氢酶、解偶
联蛋白3、过氧化物酶体增殖物反
应元件α和核呼吸因子1的表达↑;
(3)粪便脂质含量(20.4%)↑
[45]
5 高脂饲粮喂养的
雄性Swiss小鼠
16 每天灌胃0.1 mL
每千克体重50 mg
剂量的EGCG
(1)体重↓、脂肪含量↓;
(2)血浆极低密度脂蛋白、低
密度脂蛋白胆固醇和游离
脂肪酸含量↓、脂联素含量↑;
(3)肝脏脂联素受体-2、烟酰
胺腺嘌呤二核苷酸(NAD)依
赖性酶1、磷酸化的丝氨酸、苏氨
酸蛋白激酶和腺苷酸活化蛋
白激酶的蛋白表达↑;
(4)固醇调节元件结合蛋白、糖类
应答元件结合蛋白、乙酰辅酶A羧
化酶、脂肪酸合成酶蛋白的表达↓
[46]
6 高脂饲粮喂养的雄性
SHRSP-ZF大鼠,同时每
周腹腔注射2次四氯化碳
8 饮用水中添加
0.1% EGCG
(1)肝脏中谷胱甘肽巯基转移酶
P蛋白表达↓、大鼠肉瘤蛋白活性↓;
(2)肝星状细胞活化及肝脏炎症水平↓;
(3)血清血管紧张素Ⅱ含量↓、肝脏
血管紧张素转换酶和血管紧
张素Ⅱ1型受体表达↓
[47]
7 高脂饲粮和含30%
果糖的饮用水喂养的
雄C57BL/6J小鼠
8 每天灌胃每千克
体重25或50 mg
剂量的EGCG
(1)体重↓、肝脏重量↓及肝脏脂
质、总胆固醇、高密度脂蛋白含量↓;
(2)非酒精性脂肪肝病活动性
积分↓、肝脏中CD45+F4/80+
MHC-Ⅱ+巨噬细胞数量↓
[48]
序号
No.
动物模型
Animal model
试验周期
Experimental
period/周
饲喂剂量和方式
Feeding dose and
method
主要试验结果
Main experimental
results
参考文献
Reference
8 高脂饲粮喂养的雄性
Sprague-Dawley大鼠
32 16周高脂饲喂后,每
千克高脂饲粮添加
3.2 g EGCG继续
饲喂16周
(1)胰岛素受体底物-1、胰岛素
受体底物-2和磷脂酰肌醇3
激酶蛋白表达↑;
(2)Toll样受体4、KB抑制蛋白
激酶β抗体和磷酸化的
核因子激活的B细胞的κ-
轻链增强子的蛋白表达↓
[49]
9 高脂饲粮喂养的
雄性C57BL/6J小鼠
18 14周高脂饲喂后,继续
高脂饲喂4周同时每天
灌胃每千克体重50 mg
剂量的EGCG
(1)肝脏活性氧含量↓、丝裂
原活化蛋白激酶信号通路↓;
(2)肝细胞自噬蛋白表达↑;
(3)促进肝细胞细胞
周期进程
[6]

↓表示减少,↑表示增加。

↓indicated reduction, and ↑indicated increase.

1.3.1 调节肝脏及肠道炎症反应

NAFLD作为复杂的代谢性疾病,其发病机制涉及多种不同类型和功能的细胞群,在疾病的早期阶段,高脂肪、高热量饲粮和代谢紊乱等不同原因会引起肝细胞应激、损伤和死亡,并释放细胞因子和趋化因子、损伤相关的分子模式(damage associated molecular patterns,DAMPs)等,进而激活肝脏不同类型细胞,包括Kupffer细胞(Kupffer cells,KCs)、肝窦内皮细胞(liver sinusoidal endothelial cells,LSECs)、肝星状细胞(hepatic stellate cells,HSCs)等[36]。其中,免疫细胞如巨噬细胞在NAFLD和NASH的发展和进展中起到核心作用[50]。值得注意的是EGCG被证明,可有效减少高脂饲粮小鼠肝脏中CD45+F4/80+双阳性细胞的数量,表明EGCG降低了肝脏中免疫细胞的浸润。EGCG同时还增加了CD45+F4/80+CD206+和CD45+F4/80+CD23+细胞的数量,并降低了CD45+F4/80+MHC-Ⅱ+细胞的数量,表明EGCG可能通过诱导炎症型M1巨噬细胞向抗炎型M2巨噬细胞的转化并影响炎症因子的分泌而发挥抗炎作用[48],但这一猜测仍需进一步研究。Hou等[49]则证实,EGCG也能通过抑制Toll样受体4(Toll like receptor 4,TLR4)及激活B细胞的核因子-轻链增强剂通路改善肥胖小鼠肝脏炎症水平。体外试验同样表明,EGCG能以剂量依赖性的方式保护HepG2细胞免受25 mmol/L葡萄糖或0.25 mmol/L棕榈酸诱导的炎症和氧化应激,并增强HepG2细胞的胰岛素敏感性,而这一效应是通过影响GLUT2/辅助激活因子1β(peroxisome proliferator-activated receptor-gamma coactivator 1β,PGC-1β)/SREBP-1c/FAS信号轴实现的[51]。此外,EGCG还可缓解机体其他组织因高脂诱导的炎症。例如,Huang等[52]发现,0.4%的EGCG可有效预防高脂诱导的内脏和肝脏脂肪的过度积累和肝脏功能异常,不仅如此,转录组测序数据表明,与高脂组相比,添加EGCG显著抑制了小鼠回肠组织中B细胞受体信号通路、FcepsilonRI(high-affinity receptor for IgE)信号通路、自然杀伤细胞介导的细胞毒性等通路中关键基因的表达,同时肝脏以及结肠中炎症相关基因的表达显著下降[52]。Uchiyama等[16]发现,高脂饲粮中补充相对低浓度(0.1%)的EGCG同样可以降低GK(Goto-Kakizaki)大鼠脂肪组织中与炎症有关的基因和蛋白质的表达(图3)。

1.3.2 缓解肝脏氧化应激

根据“多重打击”学说,氧化应激被认为是导致肝脏损伤和NAFLD进展的主要因素。肝脏的氧化应激是由于活性氧(ROS)的积累所导致[53]。ROS包括超氧阴离子自由基(O2-·)和过氧化氢(H2O2),是肝脏不同类型细胞内能量代谢的副产物[54],肝脏脂质过载时会通过几种不同的ROS生成机制诱导大量氧化剂的产生,导致细胞中的大分子,如DNA、脂质、蛋白质等产生氧化损伤,随后进一步引起肝脏损伤[55-56]。此外,根据细胞类型、组织微环境和ROS来源的不同,ROS信号可能在诸如调节细胞稳态或参与促进代谢功能障碍和炎症反应的适应过程等正常生理过程中发挥重要作用[57-58]。因此,ROS对NAFLD的促进作用可能与氧化损伤以及氧化还原信号失调有关[59]。大量的动物和细胞试验表明,EGCG强大的抗氧化能力可以有效减轻氧化应激和相关的代谢功能障碍来防止NAFLD的发生和发展,靶向的信号通路包括但不限于核因子E2相关因子2(NF-E2-related factor 2,Nrf2)、AMPK、NAD-依赖性去乙酰化酶1(NAD-dependent deacetylase sirtuin 1,SIRT1),例如,在NASH小鼠模型中,饲粮中补充2%绿茶提取物可增加Nrf2和醌氧化还原酶1[NAD(P)H:quinone oxidoreductase 1,NQO1]mRNA的表达,并抑制肝脏脂肪变性、脂质摄取、脂肪生成基因表达并缓解受NF-κB信号通路调控的NASH[60]

2 EGCG在畜牧生产中的应用

2.1 EGCG在猪生产中的应用

猪繁殖与呼吸综合征病毒(porcine reproductive and respiratory syndrome virus,PRRSV)是一种传染力强、发病迅速、变种繁多的病毒性传染病,可感染各个品种、不同用途、不同年龄的猪只,给养猪业带来巨大损失,然而当下商用疫苗却并不能提供足够的保护力,因此,迫切需要新的安全有效的PRRSV防控措施[61]。Zhao等[61]研究发现,EGCG能以剂量依赖性的方式抑制PRRSV对MARC-145细胞的感染能力,并且相比于EGCG,Zhao等[61]合成的EGCG棕榈酸脂对于PRRSV的抑制能力更好。Ge等[62]发现,EGCG同样能以剂量依赖性的方式有效抑制猪肺泡巨噬细胞(porcine alveolar macrophages,PAM)中PRRSV的感染和复制。Yu等[63]进一步研究发现,EGCG限制PRRSV增殖的能力还与其干扰PRRSV感染后细胞脂质代谢并抑制PRRSV诱导的自噬有关。具体而言,EGCG处理消除了PRRSV感染MARC-145细胞后诱导的脂滴和自噬体的形成,并抑制了感染后细胞内甘油三酯、胆固醇、游离脂肪酸含量的增加,还显著降低了脂肪酸合成酶、乙酰辅酶A羧化酶α等脂质合成关键基因的表达,反之补充油酸则消除了EGCG对PRRSV增殖的抑制效果。然而,EGCG在PRRSV感染期间如何抑制自噬的机制尚不清楚,这一现象值得进一步研究。以上结果表明,EGCG可以作为候选药物进一步研究,以用于治疗猪的PRRSV感染。除了能调控PRRSV感染后细胞的脂质代谢外,高浓度的EGCG(100~200 μmol/L)也能显著抑制猪前体脂肪细胞的分化并促进脂解,但其背后机制同样尚不清晰[64-65],由于猪在生长后期脂肪的过多沉积会造成饲料能量浪费并增加养殖成本,因此,这一现象值得进一步研究以利于通过营养调控猪的脂肪沉积。

2.2 EGCG在鸡生产中的应用

2.2.1 EGCG在肉鸡中的作用

热应激(heat stress,HS)是造成家禽业经济损失的重要环境因素,当下,随着畜禽养殖业集约化和规模化程度的不断提高,HS发生率不断上升,已成为现代养殖业不可回避的问题。研究表明,HS主要通过引起氧化应激、降低畜禽免疫力来影响家禽的生长和生产性能[66-67]。例如,长期将肉鸡饲养在35 ℃条件下会显著上调超氧化物歧化酶(superoxide dismutase,SOD)并改变鸡肝脏NADPH氧化酶(NOXs)家族相关基因的表达,增加细胞中的过氧化氢和ROS含量,进而对肝脏造成损伤[68]。此外,HS还会损坏肉鸡肠道黏膜屏障功能并破坏肠道菌群的稳定性,导致肠道对病原体和内毒素的通透性增加[66,69]。因此,缓解氧化应激被认为是降低HS对家禽危害的途径之一。Song等[70]发现,鸡饲粮中补充600 mg/kg的EGCG能逆转HS造成的空肠绒毛萎缩,并通过抑制炎症基因如NF-κB的表达,缓解肠道炎症反应。Xue等[71]进一步发现,饲粮中补充600 mg/kg的EGCG还可以通过体内激活AMPK/Sirt1通路增强肉鸡肝脏抗氧化性以缓解HS引起的氧化损伤,改善HS过程中的脂肪、碳水化合物和蛋白质代谢,从而改善肉鸡的生长性能,这与Luo等[72]发现,EGCG能显著抑制热应激刺激下肉鸡血清尿酸(uric acid,UA)、胆固醇和甘油三酯含量的增加和血清中肌酸激酶、乳酸脱氢酶、天冬氨酸转氨酶活性的增强的结果相一致。另外,EGCG还能显著降低热应激下肉鸡肌肉乳酸含量,增加糖原含量,并激活Nrf2信号通路从而改善HS引起的肉质下降[73]。除HS外,由于过多的脂肪同样会降低肉鸡肉品质,并影响饲料转换效率以及繁殖性能,因此腹部脂肪过多是困扰畜禽养殖业的另一热点问题。Huang等[74]研究表明,罗斯308肉鸡每日口服80 mg/kg体重的EGCG可显著降低血清中甘油三酯和低密度胆固醇含量,并显著促进腹部脂肪组织中甘油三酯脂肪酶和肝脏中酰基辅酶A氧化酶等脂质分解代谢基因的表达,从而抑制肉鸡腹部脂肪过度沉积。向肉鸡饲粮中补充富含EGCG的绿茶粉被发现同样能抑制腹部脂肪沉积[75]。因此,EGCG调控肉鸡脂质代谢背后的分子机制值得进一步研究,以便将其推广应用。

2.2.2 EGCG在蛋鸡中的作用

Wang等[76]发现,饲粮中补充165 mg/kg的EGCG降低了蛋鸡血清以及鸡蛋中的丙二醛(malondialdehyde,MDA)的含量,增强了蛋鸡血液中谷胱甘肽-S-转移酶的活性,还上调了肝脏中p-38MAPKNrf2和血红素加氧酶-1(heme oxygenase-1,HO-1)的基因和蛋白表达并增加了蛋清色氨酸和蛋黄类胡萝卜素含量,这表明EGCG可以改善鸡蛋品质并增强蛋鸡的抗氧化能力。向钒中毒蛋鸡的饲粮中补充EGCG,则可通过上调蛋鸡子宫中的p-38MAPK-Nrf2/HO-1信号通路改善钒中毒蛋鸡产蛋后的蛋壳颜色和抗氧化能力[77],并可以通过下调FASSREBP1表达来减轻钒对蛋鸡肝脏和蛋黄中脂质代谢的负面影响,然而为什么钒和EGCG可以调节蛋黄中的脂肪酸代谢目前尚不清楚,有待未来的进一步研究[78]。范真真等[79]则研究发现,饲粮中高剂量的茶多酚可使蛋黄颜色得以改善,但同时会使蛋壳厚度和蛋壳重下降,并导致产蛋量减少,这一现象可能是由于茶多酚在饲粮中占比过高时,会降低饲粮适口性并影响饲粮在蛋鸡胃肠道中的消化和吸收,进而导致产蛋量减少,但这猜测还需在后续动物试验中进一步验证。

3 小结

综上所述,EGCG已被证明可通过多种途径调控多种动物机体的脂质代谢,然而,EGCG在不同动物体内发挥作用的分子机制仍有待深入研究。并且,EGCG作为一种多酚类物质,结构不稳定,这很可能导致其在发挥功效前便失去生理功能,因此,未来需要进一步开发EGCG的包被和递送方法,充分发挥EGCG应用于畜牧生产的潜力。目前,EGCG作为饲料添加剂在畜禽生产中的应用,特别是在反刍动物上的研究较少,所以EGCG在不同动物以及反刍动物不同生理状态下的添加量仍需要进一步研究确定。此外,EGCG作为饲料添加剂的成本还相对较高,因此,未来可能需要深入研究EGCG的合成和制备方法从而更好地将其应用于畜牧生产。
[1]
TANG G Y, XU Y, ZHANG C, et al. Green tea and epigallocatechin gallate (EGCG) for the management of nonalcoholic fatty liver diseases (NAFLD):insights into the role of oxidative stress and antioxidant mechanism[J]. Antioxidants, 2021, 10(7):1076.

DOI

[2]
CASANOVA E, SALVADÓ J, CRESCENTI A, et al. Epigallocatechin gallate modulates muscle homeostasis in type 2 diabetes and obesity by targeting energetic and redox pathways:a narrative review[J]. International Journal of Molecular Sciences, 2019, 20(3):532.

DOI

[3]
LAMBERT J D, LEE M J, DIAMOND L, et al. Dose-dependent levels of epigallocatechin-3-gallate in human colon cancer cells and mouse plasma and tissues[J]. Drug Metabolism and Disposition, 2006, 34(1):8-11.

PMID

[4]
WU R F, YAO Y X, JIANG Q, et al. Epigallocatechin gallate targets FTO and inhibits adipogenesis in an mRNA m6A-YTHDF2-dependent manner[J]. International Journal of Obesity, 2018, 42(7):1378-1388.

DOI

[5]
FU J D, YAO J J, WANG H, et al. Effects of EGCG on proliferation and apoptosis of gastric cancer SGC7901 cells via down-regulation of HIF-1α and VEGF under a hypoxic state[J]. European Review for Medical and Pharmacological Sciences, 2019, 23(1):155-161.

DOI PMID

[6]
WU D D, LIU Z G, WANG Y Z, et al. Epigallocatechin-3-gallate alleviates high-fat diet-induced nonalcoholic fatty liver disease via inhibition of apoptosis and promotion of autophagy through the ROS/MAPK signaling pathway[J]. Oxidative Medicine and Cellular Longevity, 2021, 2021:5599997.

[7]
LI X P, LI S Y, CHEN M, et al.(-)-epigallocatechin-3-gallate (EGCG) inhibits starch digestion and improves glucose homeostasis through direct or indirect activation of PXR/CAR-mediated phase Ⅱ metabolism in diabetic mice[J]. Food & Function, 2018, 9(9):4651-4663.

[8]
CAI Y, YU S S, CHEN T T, et al. EGCG inhibits CTGF expression via blocking NF-κB activation in cardiac fibroblast[J]. Phytomedicine, 2013, 20(2):106-113.

DOI PMID

[9]
LI W R, ZHU C N, LIU T H, et al. Epigallocatechin-3-gallate ameliorates glucolipid metabolism and oxidative stress in type 2 diabetic rats[J]. Diabetes & Vascular Disease Research, 2020, 17(6):1479164120966998.

[10]
POURNOURMOHAMMADI S, GRIMALDI M, STRIDH M H, et al. Epigallocatechin-3-gallate (EGCG) activates AMPK through the inhibition of glutamate dehydrogenase in muscle and pancreatic β-cells:a potential beneficial effect in the pre-diabetic state?[J]. The International Journal of Biochemistry & Cell Biology, 2017, 88:220-225.

DOI

[11]
CHOUCHANI E T, KAJIMURA S. Metabolic adaptation and maladaptation in adipose tissue[J]. Nature Metabolism, 2019, 1(2):189-200.

DOI PMID

[12]
KUSMINSKI C M, BICKEL P E, SCHERER P E. Targeting adipose tissue in the treatment of obesity-associated diabetes[J]. Nature Reviews Drug Discovery, 2016, 15(9):639-660.

DOI PMID

[13]
MI Y S, LIU X, TIAN H Y, et al. EGCG stimulates the recruitment of brite adipocytes,suppresses adipogenesis and counteracts TNF-α-triggered insulin resistance in adipocytes[J]. Food & Function, 2018, 9(6):3374-3386.

[14]
LEE M S, SHIN Y, JUNG S, et al. Effects of epigallocatechin-3-gallate on thermogenesis and mitochondrial biogenesis in brown adipose tissues of diet-induced obese mice[J]. Food & Nutrition Research, 2017, 61:1325307.

[15]
CHOI C, SONG H D, SON Y, et al. Epigallocatechin-3-gallate reduces visceral adiposity partly through the regulation of beclin1-dependent autophagy in white adipose tissues[J]. Nutrients, 2020, 12(10):3072.

DOI

[16]
UCHIYAMA Y, SUZUKI T, MOCHIZUKI K, et al. Dietary supplementation with a low dose of (-)-epigallocatechin-3-gallate reduces pro-inflammatory responses in peripheral leukocytes of non-obese type 2 diabetic GK rats[J]. Journal of Nutritional Science and Vitaminology, 2013, 59(6):541-547.

PMID

[17]
CHAN C Y, WEI L, CASTRO-MUÑOZLEDO F, et al. (-)-epigallocatechin-3-gallate blocks 3T3-L1 adipose conversion by inhibition of cell proliferation and suppression of adipose phenotype expression[J]. Life Sciences, 2011, 89(21/22):779-785.

DOI

[18]
KAJIMURA S, SPIEGELMAN B M, SEALE P. Brown and beige fat: physiological roles beyond heat generation[J]. Cell Metabolism, 2015, 22(4):546-559.

DOI PMID

[19]
FERNÁNDEZ-VERDEJO R, MARLATT K L, RAVUSSIN E, et al. Contribution of brown adipose tissue to human energy metabolism[J]. Molecular Aspects of Medicine, 2019, 68:82-89.

DOI

[20]
KLEPAC K, GEORGIADI A, TSCHÖP M, et al. The role of brown and beige adipose tissue in glycaemic control[J]. Molecular Aspects of Medicine, 2019, 68:90-100.

DOI PMID

[21]
DESJARDINS E M, STEINBERG G R. Emerging role of AMPK in brown and beige adipose tissue (BAT):implications for obesity,insulin resistance,and type 2 diabetes[J]. Current Diabetes Reports, 2018, 18(10):80.

DOI

[22]
GARCIA D, SHAW R J. AMPK:mechanisms of cellular energy sensing and restoration of metabolic balance[J]. Molecular Cell, 2017, 66(6):789-800.

DOI

[23]
UEDA-WAKAGI M, HAYASHIBARA K, NAGANO T, et al. Epigallocatechin gallate induces GLUT4 translocation in skeletal muscle through both PI3K- and AMPK-dependent pathways[J]. Food & Function, 2018, 9(8):4223-4233.

[24]
LI F, GAO C, YAN P, et al. EGCG reduces obesity and white adipose tissue gain partly through AMPK activation in mice[J]. Frontiers in Pharmacology, 2018, 9:1366.

DOI PMID

[25]
KANG R, ZEH H J, LOTZE M T, et al. The beclin 1 network regulates autophagy and apoptosis[J]. Cell Death and Differentiation, 2011, 18(4):571-580.

DOI PMID

[26]
LI Y, ZHAO S, ZHANG W, et al. Epigallocatechin-3-O-gallate (EGCG) attenuates FFAs-induced peripheral insulin resistance through AMPK pathway and insulin signaling pathway in vivo[J]. Diabetes Research and Clinical Practice, 2011, 93(2):205-214.

DOI

[27]
BABU P V A, LIU D M, GILBERT E R. Recent advances in understanding the anti-diabetic actions of dietary flavonoids[J]. The Journal of Nutritional Biochemistry, 2013, 24(11):1777-1789.

DOI

[28]
XU L L, LI W W, CHEN Z Q, et al. Inhibitory effect of epigallocatechin-3-O-gallate on α-glucosidase and its hypoglycemic effect via targeting PI3K/AKT signaling pathway in L6 skeletal muscle cells[J]. International Journal of Biological Macromolecules, 2019, 125:605-611.

DOI PMID

[29]
CAO H P, HININGER-FAVIER I, KELLY M A, et al. Green tea polyphenol extract regulates the expression of genes involved in glucose uptake and insulin signaling in rats fed a high fructose diet[J]. Journal of Agricultural and Food Chemistry, 2007, 55(15):6372-6378.

PMID

[30]
NISHIUMI S, BESSYO H, KUBO M, et al. Green and black tea suppress hyperglycemia and insulin resistance by retaining the expression of glucose transporter 4 in muscle of high-fat diet-fed C57BL/6J mice[J]. Journal of Agricultural and Food Chemistry, 2010, 58(24):12916-12923.

DOI PMID

[31]
UEDA-WAKAGI M, NAGAYASU H, YAMASHITA Y, et al. Green tea ameliorates hyperglycemia by promoting the translocation of glucose transporter 4 in the skeletal muscle of diabetic rodents[J]. International Journal of Molecular Sciences, 2019, 20(10):2436.

DOI

[32]
ZHANG H H, JIANG Y L, PAN J X, et al. Effect of tea products on the in vitro enzymatic digestibility of starch[J]. Food Chemistry, 2018, 243:345-350.

DOI

[33]
YANG X P, KONG F B. Evaluation of the in vitro α-glucosidase inhibitory activity of green tea polyphenols and different tea types[J]. Journal of the Science of Food and Agriculture, 2016, 96(3):777-782.

DOI

[34]
GAMBERUCCI A, KONTA L, COLUCCI A, et al. Green tea flavonols inhibit glucosidase Ⅱ[J]. Biochemical Pharmacology, 2006, 72(5):640-646.

DOI

[35]
LOOMBA R, FRIEDMAN S L, SHULMAN G I. Mechanisms and disease consequences of nonalcoholic fatty liver disease[J]. Cell, 2021, 184(10):2537-2564.

DOI PMID

[36]
FRIEDMAN S L, NEUSCHWANDER-TETRI B A, RINELLA M, et al. Mechanisms of NAFLD development and therapeutic strategies[J]. Nature Medicine, 2018, 24(7):908-922.

DOI PMID

[37]
ESLAM M, NEWSOME P N, SARIN S K, et al. A new definition for metabolic dysfunction-associated fatty liver disease:an international expert consensus statement[J]. Journal of Hepatology, 2020, 73(1):202-209.

DOI

[38]
ESLAM M, SANYAL A J, GEORGE J, et al. MAFLD:a consensus-driven proposed nomenclature for metabolic associated fatty liver disease[J]. Gastroenterology, 2020, 158(7):1999-2014.e1.

DOI

[39]
BYRNE C D, TARGHER G. NAFLD:a multisystem disease[J]. Journal of Hepatology, 2015,62 (Suppl.1):S47-S64.

[40]
WATT M J, MIOTTO P M, DE NARDO W, et al. The liver as an endocrine organ-linking NAFLD and insulin resistance[J]. Endocrine Reviews, 2019, 40(5):1367-1393.

DOI PMID

[41]
DAY C P, JAMES O F W. Steatohepatitis:a tale of two “hits”?[J]. Gastroenterology, 1998, 114(4):842-845.

DOI

[42]
BOSE M, LAMBERT J D, JU J, et al. The major green tea polyphenol,(-)-epigallocatechin-3-gallate,inhibits obesity,metabolic syndrome,and fatty liver disease in high-fat-fed mice[J]. Journal of Nutrition, 2008, 138(9):1677-1683.

DOI

[43]
CHEN Y K, CHEUNG C, REUHL K R, et al. Effects of green tea polyphenol (-)-epigallocatechin-3-gallate on newly developed high-fat/western-style diet-induced obesity and metabolic syndrome in mice[J]. Journal of Agricultural and Food Chemistry, 2011, 59(21):11862-11871.

DOI

[44]
SANTAMARINA A B, CARVALHO-SILVA M, GOMES L M, et al. Decaffeinated green tea extract rich in epigallocatechin-3-gallate prevents fatty liver disease by increased activities of mitochondrial respiratory chain complexes in diet-induced obesity mice[J]. Journal of Nutritional Biochemistry, 2015, 26(11):1348-1356.

DOI PMID

[45]
SAE-TAN S, GROVE K A, KENNETT M J, et al. (-)-epigallocatechin-3-gallate increases the expression of genes related to fat oxidation in the skeletal muscle of high fat-fed mice[J]. Food & Function, 2011, 2(2):111-116.

[46]
SANTAMARINA A B, OLIVEIRA J L, SILVA F P, et al. Green tea extract rich in epigallocatechin-3-gallate prevents fatty liver by AMPK activation via LKB1 in mice fed a high-fat diet[J]. PLoS One, 2015, 10(11):e0141227.

DOI

[47]
KOCHI T, SHIMIZU M, TERAKURA D, et al. Non-alcoholic steatohepatitis and preneoplastic lesions develop in the liver of obese and hypertensive rats:suppressing effects of EGCG on the development of liver lesions[J]. Cancer Letters, 2014, 342(1):60-69.

DOI

[48]
DU Y, PAGLICAWAN L, SOOMRO S, et al. Epigallocatechin-3-gallate dampens non-alcoholic fatty liver by modulating liver function,lipid profile and macrophage polarization[J]. Nutrients, 2021, 13(2):599.

DOI

[49]
HOU H M, YANG W L, BAO S Q, et al. Epigallocatechin gallate suppresses inflammatory responses by inhibiting toll-like receptor 4 signaling and alleviates insulin resistance in the livers of high-fat-diet rats[J]. Journal of Oleo Science, 2020, 69(5):479-486.

DOI PMID

[50]
KAZANKOV K, JØRGENSEN S M D, THOMSEN K L, et al. The role of macrophages in nonalcoholic fatty liver disease and nonalcoholic steatohepatitis[J]. Nature Reviews Gastroenterology & Hepatology, 2019, 16(3):145-159.

[51]
ZHANG Q, YUAN H, ZHANG C, et al. Epigallocatechin gallate improves insulin resistance in HepG2 cells through alleviating inflammation and lipotoxicity[J]. Diabetes Research and Clinical Practice, 2018, 142:363-373.

DOI PMID

[52]
HUANG J B, LI W J, LIAO W J, et al. Green tea polyphenol epigallocatechin-3-gallate alleviates nonalcoholic fatty liver disease and ameliorates intestinal immunity in mice fed a high-fat diet[J]. Food & Function, 2020, 11(11):9924-9935.

[53]
TAKAKI A, KAWAI D, YAMAMOTO K. Multiple hits,including oxidative stress,as pathogenesis and treatment target in non-alcoholic steatohepatitis (NASH)[J]. International Journal of Molecular Sciences, 2013, 14(10):20704-20728.

DOI

[54]
MASARONE M, ROSATO V, DALLIO M, et al. Role of oxidative stress in pathophysiology of nonalcoholic fatty liver disease[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018:9547613.

[55]
ROLO A P, TEODORO J S, PALMEIRA C M. Role of oxidative stress in the pathogenesis of nonalcoholic steatohepatitis[J]. Free Radical Biology and Medicine, 2012, 52(1):59-69.

DOI PMID

[56]
SERVIDDIO G, BELLANTI F, VENDEMIALE G. Free radical biology for medicine:learning from nonalcoholic fatty liver disease[J]. Free Radical Biology and Medicine, 2013, 65:952-968.

DOI

[57]
FORRESTER S J, KIKUCHI D S, HERNANDES M S, et al. Reactive oxygen species in metabolic and inflammatory signaling[J]. Circulation Research, 2018, 122(6):877-902.

DOI PMID

[58]
VAN DER VLIET A, JANSSEN-HEININGER Y M W, ANATHY V. Oxidative stress in chronic lung disease:from mitochondrial dysfunction to dysregulated redox signaling[J]. Molecular Aspects of Medicine, 2018, 63:59-69.

DOI

[59]
CHEN Z, TIAN R F, SHE Z G, et al. Role of oxidative stress in the pathogenesis of nonalcoholic fatty liver disease[J]. Free Radical Biology and Medicine, 2020, 152:116-141.

DOI PMID

[60]
LI J H, SAPPER T N, MAH E, et al. Green tea extract provides extensive Nrf2-independent protection against lipid accumulation and NFκB pro-inflammatory responses during nonalcoholic steatohepatitis in mice fed a high-fat diet[J]. Molecular Nutrition & Food Research, 2016, 60(4):858-870.

[61]
ZHAO C J, LIU S H, LI C Y, et al. In vitro evaluation of the antiviral activity of the synthetic epigallocatechin gallate analog-epigallocatechin gallate (EGCG) palmitate against porcine reproductive and respiratory syndrome virus[J]. Viruses, 2014, 6(2):938-950.

DOI

[62]
GE M Y, XIAO Y, CHEN H J, et al. Multiple antiviral approaches of (-)-epigallocatechin-3-gallate (EGCG) against porcine reproductive and respiratory syndrome virus infection in vitro[J]. Antiviral Research, 2018, 158:52-62.

DOI

[63]
YU P W, FU P F, ZENG L, et al. EGCG restricts PRRSV proliferation by disturbing lipid metabolism[J]. Microbiology Spectrum, 2022, 10(2):e0227621.

DOI

[64]
陈粉粉, 张立杰, 张利红, 等. EGCG对猪前体脂肪细胞增殖和分化的作用[J]. 动物学报, 2006, 52(6):1119-1124.

CHEN F F, ZHANG L J, ZHANG L H, et al. Effects of EGCG on proliferation and differentiation of porcine preadipocytes[J]. Acta Zoologica Sinica, 2006, 52(6):1119-1124. (in Chinese)

[65]
陈粉粉. EGCG对猪前体脂肪细胞增殖分化和脂解的影响[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2006.

CHEN F F. The Effects of EGCG on the proliferation,differentiation and lipolysis of porcine preadipocytes[D]. Master’s Thesis. Yangling: Northwest A&F University, 2006. (in Chinese)

[66]
AWAD W A, HESS C, HESS M. Enteric pathogens and their toxin-induced disruption of the intestinal barrier through alteration of tight junctions in chickens[J]. Toxins, 2017, 9(2):60.

DOI

[67]
ZHANG Z Y, JIA G Q, ZUO J J, et al. Effects of constant and cyclic heat stress on muscle metabolism and meat quality of broiler breast fillet and thigh meat[J]. Poultry Science, 2012, 91(11):2931-2937.

DOI PMID

[68]
HABASHY W S, MILFORT M C, REKAYA R, et al. Expression of genes that encode cellular oxidant/antioxidant systems are affected by heat stress[J]. Molecular Biology Reports, 2018, 45(3):389-394.

DOI PMID

[69]
DOKLADNY K, ZUHL M N, MOSELEY P L. Intestinal epithelial barrier function and tight junction proteins with heat and exercise[J]. Journal of Applied Physiology, 2016, 120(6):692-701.

DOI PMID

[70]
SONG J, LEI X, LUO J X, et al. The effect of Epigallocatechin-3-gallate on small intestinal morphology,antioxidant capacity and anti-inflammatory effect in heat-stressed broilers[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(4):1030-1038.

DOI

[71]
XUE B, SONG J, LIU L Z, et al. Effect of epigallocatechin gallate on growth performance and antioxidant capacity in heat-stressed broilers[J]. Archives of Animal Nutrition, 2017, 71(5):362-372.

DOI PMID

[72]
LUO J X, SONG J, LIU L Z, et al. Effect of epigallocatechin gallate on growth performance and serum biochemical metabolites in heat-stressed broilers[J]. Poultry Science, 2018, 97(2):599-606.

DOI PMID

[73]
ZHAO F, WANG X C, LI Y, et al. Effects of dietary supplementation with epigallocatechin gallate on meat quality and muscle antioxidant capacity of broilers subjected to acute heat stress[J]. Animals:an Open Access Journal From MDPI, 2021, 11(11):3296.

[74]
HUANG J B, ZHANG Y, ZHOU Y B, et al. Effects of epigallocatechin gallate on lipid metabolism and its underlying molecular mechanism in broiler chickens[J]. Journal of Animal Physiology and Animal Nutrition, 2015, 99(4):719-727.

DOI PMID

[75]
TAN Z D, HALTER B, LIU D M, et al. Dietary flavonoids as modulators of lipid metabolism in poultry[J]. Frontiers in Physiology, 2022, 13:863860.

DOI

[76]
WANG J P, JIA R, CELI P, et al. Green tea polyphenol epigallocatechin-3-gallate improves the antioxidant capacity of eggs[J]. Food & Function, 2020, 11(1):534-543.

[77]
WANG J, YUAN Z, ZHANG K, et al. Epigallocatechin-3-gallate protected vanadium-induced eggshell depigmentation via P38MAPK-Nrf2/HO-1 signaling pathway in laying hens[J]. Poultry Science, 2018, 97(9):3109-3118.

DOI PMID

[78]
QIU L Y, WANG J P, PIETRO C, et al. Effect of epigallo-catechin-3-gallate on lipid metabolism related gene expression and yolk fatty acid profiles of laying hens exposed to Vanadium[J]. Biological Trace Element Research, 2019, 190(2):501-508.

DOI PMID

[79]
范真真, 毛帅强, 侯慧文, 等. 日粮添加不同浓度茶多酚对芦花鸡蛋中表没食子儿茶素没食子酸酯和儿茶素富集、蛋品质及产蛋量的影响[J]. 黑龙江畜牧兽医, 2022(5):1-8.

FAN Z Z, MAO S Q, HOU H W, et al. Effects of different concentrations of dietary tea polyphenol on the content of epigallocatechin gallate and catechin,egg quality and egg production in Gallus domestiaus eggs[J]. Heilongjiang Animal Science and Veterinary Medicine, 2022(5):1-8. (in Chinese)

文章导航

/