研究论文

奶牛围产后期血液代谢物动态变化规律研究

  • 王菲菲 ,
  • 孔维怡 ,
  • 段静丹 ,
  • 岳康 ,
  • 刘欣 ,
  • 郭延生 , *
展开
  • 宁夏大学农学院,银川 750021
* 郭延生,副教授,硕士生导师,E-mail:

王菲菲(1997—),男,安徽阜阳人,硕士研究生,研究方向为反刍动物营养。E-mail:

Copy editor: 田艳明

收稿日期: 2022-07-05

  网络出版日期: 2023-02-13

基金资助

国家自然科学基金(32160848)

国家自然科学基金(31860719)

Study on Dynamic Change Rules of Blood Metabolites in Dairy Cows during Late Perinatal Period

  • WANG Feifei ,
  • KONG Weiyi ,
  • DUAN Jingdan ,
  • YUE Kang ,
  • LIU Xin ,
  • GUO Yansheng , *
Expand
  • College of Agriculture, Ningxia University, Yinchuan 750021, China
* associate professor, E-mail:

Received date: 2022-07-05

  Online published: 2023-02-13

摘要

本试验旨在揭示奶牛围产后期血液代谢物动态变化规律,为围产后期营养调控和代谢性疾病的预防提供参考依据。选取体况相近、胎次相同的荷斯坦奶牛7头,尾静脉采集产后0(分娩当天)、7、14和21 d血液样本,制备血浆,进行超高液相色谱-串联质谱(UPLC-MS/MS)代谢组学和代谢通路分析。结果表明:1)奶牛产后7、14和21 d血液代谢轮廓较产后0 d发生了明显改变,而产后7、14和21 d之间相比,血液代谢轮廓未发生明显变化。2)与产后0 d相比,产后7 d能量代谢相关代谢物丙酮酸、L-乳酸、D-葡萄糖和甜菜碱相对含量显著下调[P<0.05,变量重要性投影(VIP)≥1,差异倍数(FC)≤0.5],脂代谢相关代谢物肉碱C11∶DC、肉碱C12∶1、肉碱C13∶0等和氧化三甲胺(TMAO)相对含量显著下调(P<0.05,VIP≥1,FC≤0.5),氧化应激相关代谢物还原型谷胱甘肽和L-半胱氨酸相对含量显著下调(P<0.05,VIP≥1,FC≤0.5),肾上腺素和皮质醇相对含量显著下调(P<0.05,VIP≥1,FC≤0.5),胆汁酸代谢相关代谢物甘氨胆酸、甘氨脱氧胆酸、23-脱甲脱氧胆酸和甘氨鹅脱氧胆酸含量显著上调(P<0.05,VIP≥1,FC≥2)。研究结果表明,围产后期奶牛处于代谢应激和氧化应激状态,为奶牛产后护理提供了相关理论依据。

本文引用格式

王菲菲 , 孔维怡 , 段静丹 , 岳康 , 刘欣 , 郭延生 . 奶牛围产后期血液代谢物动态变化规律研究[J]. 动物营养学报, 2023 , 35(2) : 953 -967 . DOI: 10.12418/CJAN2023.092

Abstract

The purpose of this experiment was to reveal the dynamic change rules of blood metabolites in dairy cows during late perinatal period, and to provide reference for nutritional regulation and prevention of metabolic diseases in the late perinatal period. Seven Holstein dairy cows with similar body condition and the same parity were selected. Postpartum blood samples at 0 (day of delivery), 7, 14 and 21 d were collected from the tail vein to prepare plasma, and metabolomics by ultra-high performance liquid chromatography-tandem mass spectrometry (UPLC-MS/MS) and metabolic pathways were analyzed. The results showed as follows: 1) the blood metabolic profile of dairy cows at postpartum 7, 14 and 21 d was significantly changed compared with postpartum 0 d, but there was no significant change between postpartum 7, 14 and 21 d. 2) Compared with postpartum 0 d, the relative contents of related metabolites of energy metabolism such as pyruvate, L-lactic acid, D-glucose and betaine at postpartum 7 d were significantly decreased [P<0.05, variable importance in projection (VIP)≥1, fold change (FC)≤0.5]; the relative contents of related metabolites of lipid metabolism such as carnitine C11∶DC, carnitine C12∶1, carnitine C13∶0 and trimethylamine oxide (TMAO) were significantly decreased (P<0.05, VIP≥1, FC≤0.5), the relative contents of related metabolites of oxidative stress such as reduced glutathione and L-cysteine were significantly decreased (P<0.05, VIP≥1, FC≤0.5), the relative contents of epinephrine and cortisol were significantly decreased (P<0.05, VIP≥1, FC≤0.5), and the contents of related metabolites of bile acid metabolism such as glycocholic acid, glycine deoxycholic acid, 23-deoxydeoxycholic acid and glycochenodeoxycholic acid were significantly increased (P<0.05, VIP≥1, FC≥2). In conclusion, the results show that daily cows are in the state of metabolic stress and oxidative stress in the late perinatal period, which provides relevant a theoretical basis for postpartum nursing of daily cows.

目前普遍认为产前3周到产后3周是奶牛的围产期,其中产前3周称为围产前期,产后3周称为围产后期,围产期奶牛健康与其生产性能和繁殖性能密切相关[1]。尤其是围产后期受分娩、泌乳启动以及饲粮结构改变等诸多应激因素的影响,奶牛体内激素水平、代谢状态和免疫机能会发生巨大扰动,这增加了酮症、瘤胃酸中毒、乳腺炎、胎盘滞留、真胃变位和子宫炎等代谢性和炎性疾病患病风险[2]。因此,探究奶牛围产期代谢机能的变化规律对围产期的营养调控和疾病预防具有十分重要的意义。围绕奶牛围产期血液代谢物的变化国内外学者也做了大量研究。Douglas等[3]利用酶比色法发现,奶牛分娩后血清中棕榈酸、硬脂酸、油酸和亚油酸含量明显上升。Pilotto等[4]利用红外检测方法探究了奶牛围产期血液脂肪酸、β-羟基丁酸酯(BHB)和α-生育酚含量变化之间的关系,发现脂肪酸含量在奶牛分娩时达到最大值,BHB含量在奶牛分娩时增加了27%、产后30 d继续增加20%,α-生育酚含量在产犊时最低。代谢组学是通过研究生物体系受外部刺激所产生的代谢产物含量变化的一门科学[5]。与传统生理生化检测方法相比,代谢组学具有灵敏度和重复性高、样品处理简单以及可一次性测定体内大多数代谢物的优点[6]。Luo等[7]采用代谢组学技术研究了奶牛产前21 d到分娩当天血液代谢物的变化规律,发现分娩当天与氧化脂质相关的物质亚油酸、花生四烯酸、γ-亚麻酸和磷脂酰胆碱较产前21 d显著上调,而与氨基酸代谢相关的代谢物则表现出显著下调。不过,目前对于奶牛围产期血液代谢组动态变化规律的相关研究报道较少。因此,本研究采用高灵敏度和分辨率的超高液相色谱-串联质谱(UPLC-MS/MS)代谢组学技术研究了奶牛产后0(分娩当天)、7、14和21 d血液代谢物的变化情况,旨在评价奶牛围产后期体内代谢水平的变化规律,为围产后期营养调控和疾病预防提供一定的参考依据。

1 材料与方法

1.1 试验动物的选择、分组及采样

在宁夏某集约化奶牛养殖场,选择7头体重[(600±20) kg]、胎次(2~3次)和体况评分(3.2~3.5)相近的荷斯坦奶牛,分别在产后0、7、14和21 d于尾静脉采集血液。在产后21 d内每头奶牛血酮值均小于1.0,采食量和体温正常,体细胞数小于20万个/mL,经兽医诊断健康状况良好、无传染性和炎性等相关疾病。产后0 d血液样品依次标记为A-1~A-7(A组),产后7 d血液样品依次标记为B-1~B-7(B组),产后14 d血液样品依次标记为C-1~C-7(C组),产后21 d血液样品依次标记为D-1~D-7(D组);血液样品制备成血浆在-80 ℃环境中保存待测。围产后期采用统一的全混合日粮(TMR)饲喂,TMR组成及营养水平见表1
表1 奶牛围产后期TMR组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of TMR for dairy cows in late perinatal period (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
玉米青贮 Corn silage 18.80
苜蓿青贮 Alfafa silage 20.33
苜蓿干草 Alfalfa hay 5.45
麸皮 Wheat bran 2.64
全棉籽 Whole cotton seed 5.45
糖蜜 Molasses 1.82
压片玉米 Steam-flaked corn 19.81
豆粕 Soybean meal 18.67
膨化大豆 Extruded full-fat soybean 1.66
预混料 Premix1) 3.56
酵母培养物 Yeast culture 0.27
小苏打 NaHCO3 0.89
过瘤胃脂肪粉 Rumen protected fat powder 0.59
脱霉剂 De-mold agent 0.06
合计 Total 100.00
项目 Items 含量 Content
营养水平 Nutrient levels2)
泌乳净能 NEL/(MJ/kg) 7.45
粗蛋白质 CP 19.10
中性洗涤纤维 NDF 26.20
淀粉 Starch 22.80
钙 Ca 1.27
磷 P 0.62

1)每千克预混料含有 One kilogram premix contained the following:VA 240 000 IU,VE 2 000 mg,VD 72 000 IU,Co 18 mg,Se 12 mg,I 30 mg,Mn 1 600 mg,Zn 3 000 mg,Cu 300 mg,Fe 400 mg,Ca 180 g,P 68 g,NaCl 140 g。

2)计算值 Calculated values。

1.2 血液样品预处理

血液样品解冻后涡旋混匀,取50 μL于EP管中,加300 μL纯甲醇内标提取液;涡旋混匀,4 ℃ 12 396 ×g离心10 min,吸取200 μL上清液到新的EP管中,于-20 ℃静置30 min后以12 396 ×g再离心3 min,取150 μL上清液进行UPLC-MS/MS分析。

1.3 UPLC-MS/MS检测

超高液相色谱(UPLC)条件:色谱柱采用Waters ACQUITY UPLC HSS T3 C18(2.1 mm×100 mm,1.8 μm);流动相为0.1%甲酸超纯水(A)-0.1%甲酸乙腈(B);梯度洗脱0~10 min、95% A,10~11 min、10% A,11~14 min、95% A;流速0.4 mL/min;柱温40 ℃;进样量2 μL。
串联质谱(MS/MS)条件:电喷雾离子源(ESI)设为温度500 ℃,质谱电压为5 500和-4 500 V,离子源气体Ⅰ为55 psi、气体Ⅱ为60 psi,气帘气为25 psi。碰撞诱导电离设置为高,根据去簇电压和碰撞能扫描检测每个离子对。
质控过程:按一定比例混合血样提取液,制备质控(QC)样本,每10个检测分析样本中插入1个质控样本,监测分析样本在相同处理方法下的重复性;并通过对不同QC样本质谱检测分析的总离子流图进行重叠展示分析,判断代谢物提取和检测的重复性。

1.4 血液代谢组学分析

获得的原始数据导入Excel 2019,生成包含样品编号、代谢物名称和代谢物峰值的数据矩阵。将上述处理过的数据转换为csv格式导入MetaboAnalyst 5.0软件(https://www.metaboanalyst.ca/),进行主成分分析(PCA)和正交偏最小二乘判别分析(OPLS-DA),PCA用于观察组内变异情况和组间分离趋势,OPLS-DA用于筛选确定组间差异代谢物。采用Simca 14.1软件进行模型验证,将原始分类的Y矩阵、模拟200次不同排列的Y矩阵与R2Y、Q2Y进行线性回归,得到的回归直线与y轴的截距值分别为R2和Q2,用来衡量模型是否过拟合。根据OPLS-DA模型中变量重要性投影(variable importance in projection,VIP)值,选取VIP≥1的代谢物,同时结合单变量分析的差异倍数(fold change,FC)值,进一步筛选FC≥2或FC≤0.5且P<0.05的代谢物,视为最终的血液差异代谢物。将最终筛选出的血液差异代谢物聚类分析,绘制热图,考察差异代谢的可靠性。结合京都基因与基因组百科全书(KEGG)数据库、人类代谢数据库(HMDB)构建差异代谢物相关通路。

2 结果

2.1 奶牛围产后期血液代谢轮廓变化规律

从奶牛血液中共鉴定出532种代谢物,其中包含脂质168种,氨基酸及其代谢物98种,有机酸及其衍生物78种,核苷酸及其代谢物39种,碳水化合物及其代谢物32种,苯及其衍生物23种,杂环化合物21种,醇、胺类17种,胆汁酸17种,辅酶和维生素14种,激素及激素相关物质9种和其他16种。QC样本质谱检测显示,代谢物检测总离子流的曲线重叠性高,表明质谱对同一样品不同时间检测时,信号稳定性较好,结果可靠。
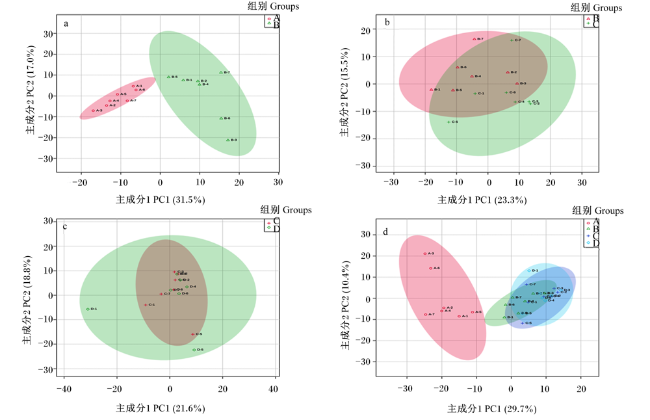
采用PCA法考察奶牛产后0、7、14和21 d血液代谢轮廓的变化。首先,对0 d与7 d、7 d与14 d、14 d与21 d血液代谢轮廓分别进行了比较,结果显示产后0 d与7 d血液代谢轮廓存在明显差异(图1-a);7 d与14 d血液代谢轮廓虽有一定差异,但大部分已重合(图1-b);14 d与21 d血液代谢轮廓已完全重合(图1-c)。其次,对0、7、14和21 d血液代谢轮廓一起进行比较,也得到了相似的变化趋势(图1-d)。这说明奶牛在产后0~7 d代谢状态和代谢物水平发生了显著变化,之后基本趋于稳定。
图1 奶牛围产后期血液代谢物PCA 2D散点图

Fig.1 2D scatter plots of PCA of blood metabolites in dairy cows in late perinatal period

2.2 奶牛围产后期血液差异代谢物的筛选及通路分析

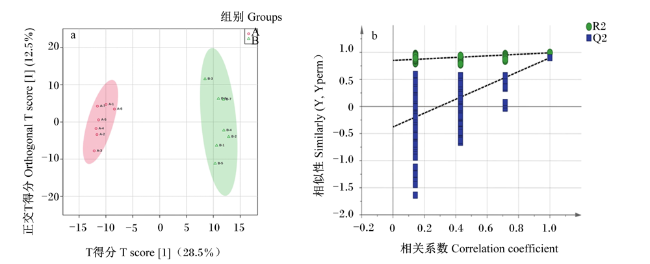
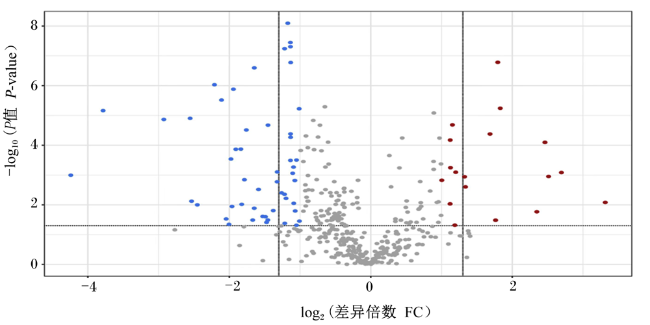
采用OPLS-DA考察导致产后0 d与7 d血液代谢轮廓差异的相关代谢物。由图2-a可见,构建OPLS-DA模型能够将产后0 d与7 d血液样本明显区分开。OPLS-DA模型验证图(图2-b)显示,随着相关系数降低(置换保留度降低),Q2和R2逐渐降低,Q2回归曲线与纵坐标轴相交于0点以下且R2≤1,说明构建的模型置换检验过关,不存在过拟合现象,可用于差异代谢物的筛选。从该模型中选取VIP≥1的代谢物,通过单变量方差分析的P值(P<0.05)和FC值(FC≥2或FC≤0.5)筛选出了72个差异代谢物,19个差异代谢物在产后7 d显著升高(VIP≥1,P<0.05,FC≥2),见表2图3;53个差异代谢物在产后7 d显著降低(VIP≥1,P<0.05,FC≤0.5),见表3图3
图2 奶牛产后0 d与7 d血液代谢物OPLS-DA得分图(a)和验证图(b)

Fig.2 OPLS-DA score plot (a) and verification plot (b) of blood metabolites in dairy cows at postpartum 0 d and 7 d

表2 奶牛产后7 d表达上调的血液代谢物及其相关参数

Table 2 Up-regulated blood metabolites and their related parameters in dairy cows at postpartum 7 d

差异代谢物
Differential metabolites
平均峰值
Average peak value
差异
倍数
FC
变量重
要性投影
VIP
P
P-value
差异代谢物
Differential metabolites
平均峰值
Average peak value
差异
倍数
FC
变量重要
性投影
VIP
P
P-value
7 d 0 d 7 d 0 d
溶血磷脂酰乙醇
18∶2 PysoPE 18∶2
1.88×10⁷ 3.77×10⁶ 3.56 1.73 8.24×10⁻⁴ 庚二酸
Pimelic acid
1.45×10⁶ 3.98×10⁵ 2.51 1.47 1.14×10⁻³
溶血磷脂酰胆碱
18∶3(2n异构2)
LysoPC 18∶3 (2n isomer 2)
2.13×10⁷ 6.74×10⁶ 2.30 1.48 8.02×10⁻⁴ 壬二酸
Azelaic acid
9.40×10⁵ 3.18×10⁵ 2.18 1.59 6.70×10⁻⁵
溶血磷脂酰乙醇胺
20∶4 (2n异构1)
PysoPE 20∶4 (2n isomer 1)
3.29×10⁶ 1.07×10⁶ 2.23 1.71 2.07×10⁻⁵ 胞苷
Cytidine
2.64×10⁶ 9.09×10⁵ 2.18 1.50 5.66×10⁻⁴
溶血磷脂酰乙醇胺
20∶5(2n异构1)
PysoPE 20∶5 (2n isomer 1)
1.81×10⁵ 5.90×10⁴ 2.18 1.31 9.27×10⁻³ 甘氨鹅脱氧胆酸
Glycochenodeoxycholic acid
1.99×10⁷ 2.31×10⁶ 6.48 1.50 8.24×10⁻⁴
溶血磷脂酰乙醇
20∶5 PysoPE 20∶5
1.81×10⁵ 5.90×10⁴ 2.18 1.31 9.27×10⁻³ 甘氨脱氧胆酸
Glycine deoxycholic acid
1.23×10⁶ 1.62×10⁵ 5.71 1.51 1.12×10⁻³
肉碱C22∶2
Carnitine C22∶2
4.60×10⁴ 1.73×10⁴ 2.01 1.41 1.50×10⁻³ 甘氨胆酸
Glycocholic acid
6.18×10⁷ 9.41×10⁶ 5.09 1.20 1.71×10⁻²
十二烷二酸
Dodecanedioic acid
7.48×10⁵ 1.62×10⁵ 3.47 1.76 1.65×10⁻⁷ 23-脱甲脱氧胆酸
23-deoxydeoxycholic acid
2.06×10⁴ 6.77×10³ 2.28 1.04 4.81×10⁻²
氧化三甲胺
TMAO
4.20×10⁶ 5.54×10⁵ 5.51 1.65 8.00×10⁻⁵ 对羟基苯丙酸
3-(4-hydroxyphenyl)-
propionic acid
5.23×10⁴ 1.46×10⁴ 2.53 1.36 2.49×10⁻³
DL-1-氨基-2-丙醇
DL-1-aminopropan-2-ol
4.20×10⁶ 5.54×10⁵ 5.51 1.65 8.00×10⁻⁵ N-(2-糠酰)甘氨酸
N-2-furoylglycine
2.56×10⁵ 1.97×10⁴ 9.95 1.21 8.28×10⁻³
孕烯醇
Pregnanetriol
5.15×10⁴ 1.17×10⁴ 3.22 1.63 4.19×10⁻⁵
图3 奶牛产后0 d与7 d血液代谢物火山图

图中每一个点表示一种代谢物,蓝点代表下调的差异代谢物(P<0.05),红点代表上调的差异代谢物(P<0.05),灰色的点则代表差异不显著的代谢物(P>0.05)。

Fig.3 Volcano map of blood metabolite in dairy cows at postpartum 0 d and 7 d

Each point in the figure represented a metabolite, blue dots represented down-regulated differential metabolites (P<0.05), red dots represented upregulated differential metabolites (P<0.05), and gray dots represented metabolites that were not significantly different (P>0.05).

表3 奶牛产后7 d表达下调的血液代谢物及其相关参数

Table 2 Down-regulated blood metabolites and their related parameters in dairy cows at postpartum 7 d

差异代谢物
Differential metabolites
平均峰值
Average peak value
差异
倍数
FC
变量重
要性投影
VIP
P
P-value
差异代谢物
Differential metabolites
平均峰值
Average peak value
差异
倍数
FC
变量重
要性投影
VIP
P
P-value
7 d 0 d 7 d 0 d
盐酸水苏碱
Stachydrine hydrochloride
1.18×10⁷ 1.94×10⁷ 0.44 1.81 8.04×10⁻⁹ 肉碱C14∶1
Carnitine C14∶1
2.74×10⁵ 6.02×10⁵ 0.36 1.20 2.50×10⁻²
DL-苄基琥珀酸
DL-benzylsuccinic acid
3.49×10⁴ 4.94×10⁴ 0.48 1.00 4.83×10⁻² 16-羟基十六酸
16-hydroxyhexadecanoic acid
1.09×10⁵ 2.15×10⁵ 0.35 1.12 2.45×10⁻²
肉碱C13∶1
Carnitine C13∶1
2.18×10⁵ 3.56×10⁵ 0.48 1.29 1.60×10⁻² (±)17-HETE 1.82×10³ 3.78×10³ 0.33 1.33 3.04×10⁻³
硬脂酰乙醇酰胺
N-(2-hydroxyethyl) streamside
9.38×10⁴ 1.50×10⁵ 0.47 1.46 8.71×10⁻⁴ (±)18-HETE 1.82×10³ 3.78×10³ 0.33 1.33 3.04×10⁻³
石榴酸
Punicic acid
2.08×10⁵ 3.29×10⁵ 0.46 1.62 5.39×10⁻⁵ 二氢鞘氨醇1-磷酸盐
Sphingosine 1-phosphate
1.99×10⁴ 4.57×10⁴ 0.32 1.79 2.52×10⁻⁷
肉碱C13∶0
Carnitine C13∶0
4.97×10⁴ 8.75×10⁴ 0.44 1.40 6.06×10⁻³ 肉碱C14-OH
Carnitine C14-OH
5.81×10⁴ 1.46×10⁵ 0.31 1.17 3.24×10⁻²
十二烷肉碱
Dodecyl carnitine
6.21×10⁴ 1.12×10⁵ 0.43 1.13 4.17×10⁻² 肉碱C17∶1∶DC
Carnitine C17∶1∶DC
2.93×10⁴ 9.40×10⁴ 0.25 1.12 4.52×10⁻²
肉碱C12∶1
Carnitine C12∶1
1.44×10⁵ 2.75×10⁵ 0.40 1.49 1.68×10⁻³ DL-肉碱
DL-carnitine
1.50×10⁶ 3.05×10⁶ 0.37 1.70 2.11×10⁻⁵
血栓素B2
TXB2
4.58×10³ 8.64×10³ 0.38 1.15 1.56×10⁻² (S)-2-羟基戊二酸
(S)-2-hydroxyglutaric acid
3.49×10⁴ 4.94×10⁴ 0.48 1.00 4.83×10⁻²
肉碱C11∶DC
Carnitine C11∶DC
3.62×10⁴ 7.72×10⁴ 0.36 1.15 3.23×10⁻² 3-羟基戊二酸
3-hydroxyglutaric acid
8.24×10⁴ 1.29×10⁵ 0.46 1.61 4.16×10⁻⁵
眯基牛磺酸
Guanidinoethyl sulfonate
3.42×10⁴ 6.44×10⁴ 0.36 1.04 3.88×10⁻² 磷酸胆碱
Phosphocholine
1.75×10⁷ 2.79×10⁷ 0.45 1.80 3.57×10⁻⁸
丙酮酸
Pyruvic acid
5.87×10³ 1.48×10⁴ 0.29 1.49 1.43×10⁻³ 富马酸二甲酯
Dimethyl fumarate
1.25×10⁷ 2.01×10⁷ 0.46 1.78 1.67×10⁻⁷
L-乳酸
L-lactic acid
5.47×10⁵ 1.41×10⁶ 0.28 1.58 1.35×10⁻⁴ 甜菜碱
Betaine
8.27×10⁴ 1.21×10⁵ 0.50 1.70 5.95×10⁻⁶
羟苯基乳酸
Hydroxyphenyllactic acid
7.98×10⁴ 2.29×10⁵ 0.25 1.56 2.90×10⁻⁴ 曲二糖
Kojibiose
3.20×10⁴ 3.32×10⁵ 0.07 1.69 6.88×10⁻⁶
差异代谢物
Differential metabolites
平均峰值
Average peak value
差异
倍数
FC
变量重
要性投影
VIP
P
P-value
差异代谢物
Differential metabolites
平均峰值
Average peak value
差异
倍数
FC
变量重
要性投影
VIP
P
P-value
7 d 0 d 7 d 0 d
柠檬酸
Citric acid
3.77×10⁶ 1.17×10⁷ 0.24 1.13 2.97×10⁻² 肾上腺素
Epinephrine
8.27×10⁴ 1.21×10⁵ 0.50 1.70 5.95×10⁻⁶
己六醇
Dulcitol
1.00×10⁴ 1.77×10⁴ 0.42 1.30 3.96×10⁻³ 皮质醇
Cortisol
3.20×10⁴ 3.32×10⁵ 0.07 1.69 6.88×10⁻⁶
D-山梨糖醇
D-sorbitol
5.56×10³ 1.58×10⁴ 0.27 1.61 1.37×10⁻⁴ 2-甲基鸟苷
2-methylguanosine
1.23×10⁶ 1.98×10⁶ 0.48 1.53 1.52×10⁻³
D-葡萄糖
D-glucose
1.27×10⁵ 3.52×10⁵ 0.26 1.75 1.31×10⁻⁶ 7-甲基鸟苷
7-methylguanosine
1.23×10⁶ 1.98×10⁶ 0.48 1.53 1.52×10⁻³
苏糖醇
Threitol
7.94×10³ 2.63×10⁴ 0.22 1.75 9.31×10⁻⁷ 磷酸肌酸钠
Creatine phosphate
1.21×10⁶ 1.93×10⁶ 0.46 1.79 4.92×10⁻⁸
sn-甘油-3-磷酸胆碱
sn-glycero-3-phosphocholine
1.07×10⁵ 2.52×10⁵ 0.28 1.20 9.60×10⁻³ 5-甲基尿苷
5-methyluridine
1.36×10⁵ 2.30×10⁵ 0.43 1.32 4.43×10⁻³
黄嘌呤核苷
Xanthosine
3.43×10⁴ 1.28×10⁵ 0.17 1.27 7.55×10⁻³ 5-L-谷氨酰-L-丙氨酸
5-L-glutamyl-L-alanine
2.25×10⁴ 3.50×10⁴ 0.50 1.12 3.51×10⁻²
N-乙酰神经氨酸
N-acetylneuraminic acid
4.62×10⁴ 7.30×10⁴ 0.47 1.34 8.88×10⁻³ N-乳酰基苯丙氨酸
N-lactoyl-phenylalanine
2.85×10⁴ 9.10×10⁴ 0.23 1.70 3.03×10⁻⁶
N-乙酰基甘氨酸
N-acetylglycine
3.84×10⁷ 5.80×10⁷ 0.47 1.49 5.40×10⁻⁴ L-苯丙氨酸-L-苯丙氨酸
L-Phe-L-Phe
6.91×10³ 2.82×10⁴ 0.18 1.26 9.99×10⁻³
蛋氨酸亚砜
Methionine sulfoxide
1.03×10⁶ 1.75×10⁶ 0.43 1.78 5.74×10⁻⁸ 高精氨酸
Homoarginine
6.98×10⁴ 2.97×10⁵ 0.17 1.67 1.25×10⁻⁵
半胱氨酰甘氨酸
Cys-Gly
3.44×10⁴ 7.97×10⁴ 0.32 1.28 1.30×10⁻² 还原型谷胱甘肽
Reduced glutathione
2.20×10⁴ 5.25×10⁴ 0.30 1.61 3.07×10⁻⁵
L-半胱氨酸
L-cysteine
1.21×10⁴ 3.51×10⁴ 0.26 1.30 1.13×10⁻² 11-顺视黄醇
11-cis-retinol
2.78×10⁴ 5.14×10⁴ 0.40 1.40 7.86×10⁻⁴
D-甘露醇
D-mannitol
3.10×10⁴ 4.06×10⁵ 0.05 1.43 1.01×10⁻³
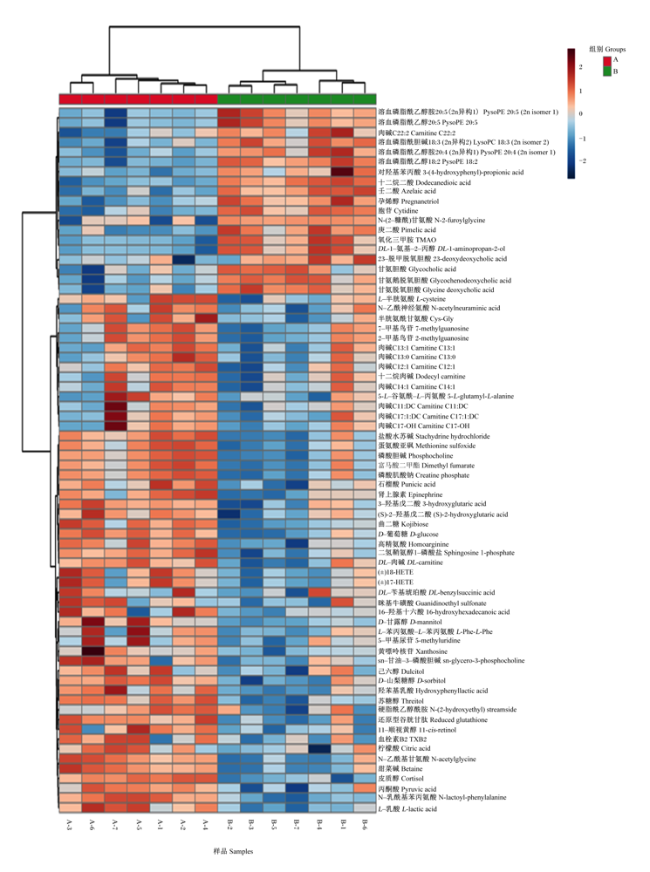
将72个差异代谢物进行了聚类分析,结果显示这些差异代谢物能明显将产后0 d与7 d血液样品进行区分(图4),说明筛选出的差异代谢物能真实反映产后0 d与7 d血液代谢轮廓情况。
图4 奶牛产后0 d与7 d血液中72个差异代谢物聚类热图

Fig.4 Heat map of 72 differential metabolite clusters in dairy cows at postpartum 0 d and 7 d

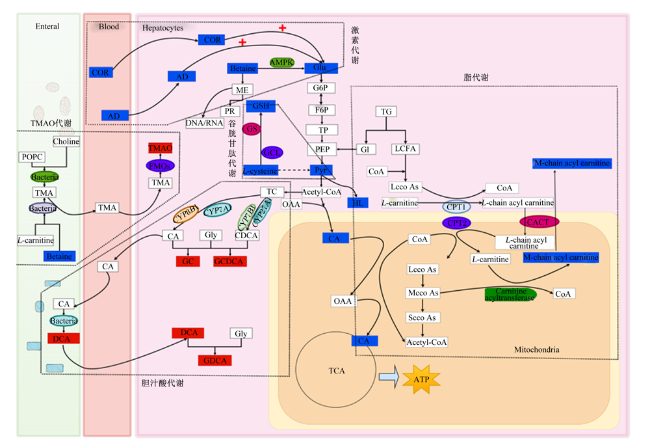
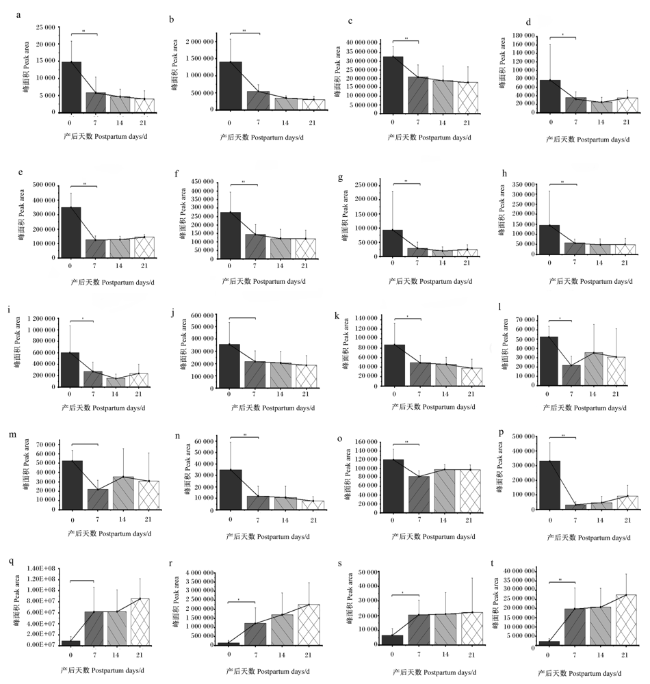
通路分析结果显示,差异代谢物主要涉及能量代谢、脂代谢、胆汁酸代谢、激素代谢和氧化应激等通路(图5)。与能量代谢相关代谢物为丙酮酸、L-乳酸、D-葡萄糖和甜菜碱,与脂代谢相关代谢物有肉碱C11∶DC、肉碱C12∶1、肉碱C13∶0等和氧化三甲胺(TMAO),与氧化应激相关的代谢物有还原型谷胱甘肽和L-半胱氨酸,激素类物质包括肾上腺素和皮质醇,与胆汁酸代谢相关代谢物有甘氨胆酸、甘氨脱氧胆酸、23-脱甲脱氧胆酸和甘氨鹅脱氧胆酸。相关代谢物在产后0、7、14和21 d血液相对浓度变化趋势见图6
图5 奶牛产后0 d与7 d血液差异代谢物通路分析

Enteral:肠内;TMAO:氧化三甲胺 trimethylamine oxide;POPC:磷脂酰胆碱 phosphatidylcholine;Choline:胆碱;Bacteria:细菌;TMA:三甲胺 trimethylamine;L-carnitine:L-肉碱;Betaine:甜菜碱;CA:柠檬酸 citric acid;DCA:脱氧胆酸 deoxycholic acid;Blood:血液;COR:皮质醇 cortisol;AD:肾上腺素 epinephrine;Hepatocytes:肝细胞;FMOs:黄素单氧酶 flavin monoxygenases;AMPK:腺苷酸活化蛋白激酶 adenosine monophosphate activated protein kinase;ME:甲基 methyl;PR:蛋白质 protein;GSH:谷胱甘肽 glutathione;GS:谷胱甘肽合成酶 glutathione synthetase;GCL:谷氨酸半胱氨酸连接酶 glutamate-cysteine ligase;L-cysteine:L-半胱氨酸;Glu:葡萄糖 glucose;G6P:葡萄糖-6-磷酸 glucose-6-phosphate;F6P:果糖-6-磷酸 fructose-6-phosphate;TP:磷酸丙糖 triose phosphate;PEP:磷酸烯醇式丙酮酸 phosphoenolpyruvic acid;Pyr:丙酮酸 pyruvic acid;Acetyl-CoA:乙酰辅酶A acetyl coenzyme A;TC:总胆固醇 total cholesterol;CYP8B1:甾醇12α-羟化酶 sterol 12α-hydroxylase;CYP7A1:胆固醇7α-羟化酶 cholesterol 7α-hydroxylase;CYP7B1:25-羟基胆固醇7α-羟化酶 25-hydroxycholesterol 7α-hydroxylase;CYP27A1:甾醇27α-羟化酶 sterol 27α-hydroxylase;Gly:甘氨酸 glycine;CDCA:鹅脱氧胆酸 chenodesoxycholic acid;GC:甘氨胆酸 glycocholic acid;GCDCA:甘氨鹅脱氧胆酸 glycochenodeoxycholic acid;GDCA:甘氨脱氧胆酸 glycine deoxycholic acid;OAA:草酰乙酸 oxaloacetic acid;TCA:三羧酸循环 tricarboxylic acid cycle;HL:乳酸 lactic acid;TG:甘油三酯 triglyceride;GI:甘油 glycerin;LCFA:长链脂肪酸 long-chain fatty acid;CoA:辅酶A coenzyme A;Lcco As:长链脂酰辅酶A long-chain fatty acyl CoA;Mcco As:中链脂酰辅酶A mid-chain fatty acyl CoA;Scco As:短链脂酰辅酶A short-chain fatty acyl CoA;CPT1:肉碱棕榈酰转移酶1 carnitine palmitoyl transferase 1;CPT2:肉碱棕榈酰转移酶2 carnitine palmitoyl transferase 2;CACT:肉毒碱/酰基肉毒碱转移酶 carnitine/acylcarnitine transferase;L-chain acyl carnitine:长链酰基肉碱 long-chain acyl carnitine;M-chain acyl carnitine:中链酰基肉碱 mid-chain acyl carnitine;Carnitine acyltransferase:肉碱酰基转移酶;Mitochondria:线粒体。

奶牛产后7 d对0 d表现为上调的差异代谢物为红色,表现为下调的差异代谢物为蓝色,+表示促进作用。Compared with postpartum 0 d, the up-regulated differential metabolites at postpartum 7 d were red, the down-regulated differential metabolites were blue, and + represented the promoting effect.

Fig.5 Analysis of blood differential metabolite pathways in dairy cows at postpartum 0 d and 7 d

图6 奶牛产后0~21 d相关代谢物变化趋势图

a:丙酮酸 pyruvic acid;b:L-乳酸 L-lactic acid;c:D-葡萄糖 D-glucose;d:甜菜碱 betaine;e:肉碱C11∶DC carnitine C11∶DC;f:肉碱C12∶1 carnitine C12∶1;g:肉碱C17∶1∶DC carnitine C17∶1∶DC;h:肉碱C14-OH carnitine C14-OH;i:肉碱C14∶1 carnitine C14∶1;j:肉碱C13∶1 carnitine C13∶1;k:肉碱C13∶0 carnitine C13∶1;l:还原型谷胱甘肽 reduced glutathione;m:氧化三甲胺 TMAO;n:L-半胱氨酸 L-cysteine;o:肾上腺素 epinephrine;p:皮质醇 cortisol;q:甘氨胆酸 glycocholic acid;r:甘氨脱氧胆酸 glycine deoxycholic acid;s:23-脱甲脱氧胆酸 23-deoxydeoxycholic acid;t:甘氨鹅脱氧胆酸 glycochenodeoxycholic acid。

*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。* mean significant difference (P<0.05), ** mean extremely significant difference (P<0.01).

Fig.6 Change trends of related metabolites in dairy cows in postpartum 0 to 21 d

3 讨论

3.1 奶牛围产后期能量代谢动态变化规律

大部分奶牛(尤其是高产奶牛)无法短期内摄入足量干物质以满足分娩过程和产后泌乳启动对能量的需求[8],使其处于能量代谢负平衡(NEB)的应激状态[9]。葡萄糖是主要供能物质,奶牛泌乳时机体内需要动员大量的葡萄糖合成乳糖[10]。葡萄糖首先被氧化为丙酮酸,后者不仅可以通过有氧氧化途径进入三羧酸(TCA)循环产生柠檬酸,还可以通过无氧糖酵解途径产生乳酸。Zhang等[11]报道,血清中乳酸的主要来源是糖酵解,其特征是丙酮酸通过乳酸脱氢酶转化为乳酸。另有研究发现,甜菜碱是一种内源性的腺苷酸活化蛋白激酶(AMPK)激活剂,通过肝激酶B1(LKB1,AMPK上游主要的激酶)去磷酸化激活AMPK,在细胞能量稳态调节中起到关键作用,是脂代谢和糖代谢的主要调控因子,能够促进ATP的积累[12]。本试验结果显示,奶牛产后7 d血浆葡萄糖、丙酮酸、柠檬酸、乳酸和甜菜碱含量较产后0 d显著下调,而产后7、14和21 d之间,上述代谢物含量无显著差异。这表明奶牛在围产后期受泌乳启动的影响,能量需要激增,机体处于较分娩时更严重的NEB应激状态。

3.2 奶牛围产后期酰基肉碱(ACC)变化规律

目前关于ACC与动物生产性能和健康需求之间的关系还需深入研究[13]。奶牛从妊娠过度到哺乳期时,将脂肪酸完全氧化为二氧化碳(CO2)的能力降低,而不完全氧化为酸溶性代谢物的能力升高[14]。动物体内肉碱分为游离肉碱和ACC,主要分布在对能量需求较高的组织中,是参与细胞内能量代谢的关键物质[15]。游离肉碱又称左旋肉碱,是长链脂肪酸进入线粒体所必须的载体,β-氧化的关键步骤是形成ACC,在脂肪酸氧化代谢中起重要作用[16]。大多数高产奶牛在围产期都会经历NEB过程,会导致不同组织出现代谢紊乱,尤其是脂肪组织。位于细胞质的长链酰基辅酶A合成酶(ACSL)将脂肪酸转化为长链脂酰基辅酶A,然后在肉碱棕榈酰转移酶-1a(CPT-1a)的催化作用下,长链脂酰基辅酶A与游离肉碱发生酯交换反应生成ACC[17]。ACC先后通过线粒体外膜的电压依赖性阴离子通道(VDAC)和线粒体内膜的肉毒碱/酰基肉毒碱转移酶(CACT)进入线粒体基质,参与脂肪酸的β-氧化[18]。ACC的积累不仅反映了脂肪酸氧化能力的降低,也反映了脂肪酸向甘油三酯合成和胰岛素拮抗的脂质介质的分配[19]。ACC代谢也与非酒精性脂肪肝(FLD)发展有关,FLD患者肝酰基肉碱含量升高。有研究认为,肝脏ACC的积累可通过有机阳离子/肉碱转运蛋白-2机制促进其在循环中的积累[20]。如Rico等[21]发现,在产后动员更多脂肪酸的奶牛血浆肉碱C14∶0、肉碱C16∶0、肉碱C18∶0和肉碱C20∶0含量升高,同时血浆总ACC水平与循环总FA浓度以及神经酰胺呈正相关[13]。未被氧化的肝脏FA可以作为甘油三酯酯化反应的底物或用于合成神经酰胺,神经酰胺能拮抗胰岛素刺激的葡萄糖的摄取[21]。本研究结果显示,奶牛产后7~21 d血浆ACC(包括中链和长链酰基肉碱)含量较产后0 d显著下降,说明奶牛产后脂肪酸氧化能力较分娩前有一定程度的恢复。

3.3 奶牛围产后期TMAO变化规律

TMAO是一种肠源性菌群代谢产物,由肝脏中的黄素单氧酶(FMOs)氧化三甲胺(TMA)生成。肠道中部分菌群将直接摄入或间接产生的胆碱、磷脂酰胆碱、甜菜碱和游离肉碱分别通过胆碱-TMA裂解酶(CutC)、甘氨酸甜菜碱还原酶(GrdH)和肉碱加氧酶(CntA)转化为TMA,后者经肝门静脉转运至肝脏氧化生成TMAO[22]。Makrecka-Kuka等[23]报道,TMAO可减少心脏线粒体中丙酮酸和脂肪酸氧化,通过减少丙酮酸脱氢酶(PDH)底物通量,并抑制β-氧化,从而导致心脏细胞能量产生不足。也有学者发现,TMAO还与脂肪肝的形成有关,TMAO通过改变胆汁酸的合成和运输或阻断肝脏胰岛素信号通路,从而影响脂代谢、肝脏甘油三酯含量和葡萄糖稳态,进而促进脂肪肝的形成[24]。本试验结果显示,奶牛产后7 d血清TMAO含量较产后0 d显著上调,而与TMAO生成相关的代谢物,除了酰基肉碱外,还有甜菜碱和磷酸胆碱的含量也显著下调,而产后7、14和21 d之间上述代谢物含量无显著差异。这提示血清TMAO极可能是奶牛围产期后期NEB发展和脂肪肝形成的潜在生物标志物,但还需进一步试验验证。

3.4 奶牛围产后期氧化应激相关代谢物变化规律

饱和脂肪酸使线粒体超负荷工作导致氧化还原反应稳态失衡,导致大量活性氧(ROS)自由基生成,最终引起氧化应激。ROS的持续产生会激活丝氨酸/苏氨酸激酶信号级联反应,抑制胰岛素诱导的受体底物的感应[25]。据报道,氧化应激与非反刍动物胰岛素抵抗和FLD发展存在一定联系,胰岛素抵抗可以增加肝脏内脂质含量,并促进单纯性脂肪变性。氧化应激也可促进Kupffer细胞活化,激活氧化还原敏感转录因子,包括核因子-κB,并上调促炎因子肿瘤坏死因子-α(TNF-α),进一步降低抗氧化能力并促进肝细胞损伤[13]。Videla等[26]研究发现,大量ROS可引起肝脏脂肪酸去饱和作用降低和过氧化增强,使n-3长链多不饱和脂肪酸耗竭。多不饱和脂肪酸氧化形成具有多种炎症功能的氧化脂质。如由n-6花生四烯酸和亚油酸衍生的氧化脂质羟基十八烷二烯酸和羟基二十烷四烯酸具有促炎作用。围产期奶牛大多数经历氧化应激状态,氧化应激又会增强脂解作用,生成的不饱和脂肪酸既可以氧化为过氧化氢和异前列腺素[27],又可生成β-羟基丁酸盐,这可引起ROS介导的p38丝裂原活化蛋白激酶活化,促进肝细胞凋亡[28]。另外,脂肪酸可能通过ROS依赖的炎症机制诱导产生内核因子-κB,参与了FLD的病理变化。大量研究还表明,ROS或氧化脂质的积累可能会影响牛的免疫反应[13]。还原性谷胱甘肽(GSH)是体内重要的抗氧化剂和自由基清除物,不仅参与缓解机体氧化应激,还能够促进胆汁酸代谢和肠道消化吸收,增强肝脏脂肪代谢[29]。半胱氨酸是GSH的前体物,半胱氨酸在谷氨酸半胱氨酸连接酶(GCL)作用下先转变成γ-谷氨酰胺半胱氨酸,然后在谷胱甘肽合成酶(GS)作用下转化为GSH,参与缓解奶牛围产期氧化应激[30]。Li等[30]报道,甜菜碱除了能调节糖脂代谢外,还通过调节ROS的产生,保护牛乳腺上皮细胞免受热暴露诱导的氧化应激和凋亡,可用于缓解奶牛热应激和提高产奶量。本试验结果显示,奶牛产后7 d较0 d血浆GSH、L-半胱氨酸和甜菜碱的含量显著下降,而产后7、14和21 d这些代谢物含量均无显著差异,这提示健康奶牛围产后期抗氧化能力较产前下降。

3.5 奶牛围产后期皮质醇和肾上腺素的变化规律

已有研究证实,奶牛分娩时皮质醇、肾上腺素、去甲肾上腺素、催产素、加压素和内啡肽等激素的分泌水平会发生不同程度改变[31-32]。本研究采用UPLC-MS/MS代谢组学方法仅检测到了血浆中含有皮质醇和肾上腺素2种激素,结果显示奶牛产后0 d血浆皮质醇和肾上腺素含量显著高于产后7、14和21 d,而两者在7、14和21 d之间差异不显著。皮质醇主要功能是通过增强氨基酸糖异生的方式提高血糖浓度,尤其支持对葡萄糖需求高的生理活动例如生产和泌乳早期[33]。另外有研究发现,皮质醇还是与子宫炎、低钙血症和乳腺炎相关的应激和疼痛的一个既定的指标[34]。Sgorlon等[34]报道,当机体出现严重应激时血液中皮质醇含量显著增加。Vannucchi等[35]报道,奶牛在分娩后出现高血糖且与血液皮质醇含量呈正相关。由于剧烈疼痛以及胎儿和母体之间的相互作用,引起奶牛分娩时血浆中肾上腺素含量上升[36]。也有学者发现围产期奶牛NEB程度与哺乳早期脑垂体活动和肾上腺皮质反应性之间存在关联[37]。因此,奶牛产后0 d高血浆皮质醇和肾上腺素含量可能是围产前期代谢应激、分娩应激和疼痛的综合作用结果。

3.6 奶牛围产后期胆汁酸代谢变化规律

胆汁酸在肝脏中产生,其在胆汁酸稳态、营养吸收和胆固醇稳态等代谢过程中发挥重要的调节作用[38]。肝脏中生成的胆汁酸,首先进入肠道参与消化吸收,后经肠道重吸收,大约95%的胆汁酸经门静脉返回肝脏,仅有少部分进入血液循环[39]。另外,胆汁酸还可以通过激活法尼醇X受体(FXR)和G蛋白偶联的胆汁酸受体1(GPBAR1/TGR5)来充当信号分子。初级胆汁酸通过经典(中性)和替代(酸性)2种途径合成[40]。其中,经典途径占胆汁酸总合成的75%,肝脏中胆固醇在胆固醇7α-羟化酶(CYP7A1)作用下转化为7α-羟胆固醇,随后被甾醇12α-羟化酶(CYP8B1)氧化裂解为胆酸[41]。在替代途径中胆固醇在甾醇27α-羟化酶(CYP27A1)的催化下生成27α-羟基胆固醇,随后在25-羟基胆固醇7α-羟化酶(CYP7B1)作用下生成鹅脱氧胆酸[42]。游离胆汁酸包括胆酸、鹅脱氧胆酸、脱氧胆酸和石胆酸4种,这些结合胆汁酸可进一步与甘氨酸和牛磺酸结合生成次级胆汁酸包括甘氨胆酸、甘氨鹅脱氧胆酸和牛磺胆酸等。Li等[43]研究发现,胆汁酸在控制肠肝系统中葡萄糖和脂质的代谢以及外周组织的能量消耗方面也起着关键调节作用。Mazalli等[46]报道,奶牛泌乳启动后,肝脏中与胆汁酸合成相关基因的mRNA表达量升高。本试验采用UPLC-MS/MS代谢组学技术也发现了相似的结果,即奶牛产后7 d血浆中与胆汁酸代谢相关的物质甘氨胆酸、甘氨脱氧胆酸、23-脱甲脱氧胆酸和甘氨鹅脱氧胆酸含量显著高于产后0 d,而产后7、14和21 d之间这些代谢物含量无显著差异,推测这可能与奶牛分娩后泌乳启动、采食量和消化吸收逐渐恢复有关。

4 结论

本试验采用UPLC-MS/MS代谢组学技术研究了奶牛产后0、7、14和21 d血液代谢物的动态变化规律,结果表明产后7 d内代谢轮廓发生了明显改变,围产后期奶牛处于代谢应激和氧化应激状态。
[1]
WANG J G, ZHU X Y, SHE G H, et al. Serum hepatokines in dairy cows:periparturient variation and changes in energy-related metabolic disorders[J]. BMC Veterinary Research, 2018, 14(1):236.

DOI

[2]
ABUELO A, HERNÁNDEZ J, BENEDITO J L, et al. Redox biology in transition periods of dairy cattle:role in the health of periparturient and neonatal animals[J]. Antioxidants, 2019, 8(1):20.

DOI

[3]
DOUGLAS G N, REHAGE J, BEAULIEU A D, et al. Prepartum nutrition alters fatty acid composition in plasma,adipose tissue,and liver lipids of periparturient dairy cows[J]. Journal of Dairy Science, 2007, 90(6):2941-2959.

DOI

[4]
PILOTTO A, SAVOINI G, BALDI A, et al. Short communication:associations between blood fatty acids,β-hydroxybutyrate,and α-tocopherol in the periparturient period in dairy cows:an observational study[J]. Journal of Dairy Science, 2016, 99(10):8121-8126.

DOI

[5]
OTT K H, ARANÍBAR N, SINGH B, et al. Metabonomics classifies pathways affected by bioactive compounds.Artificial neural network classification of NMR spectra of plant extracts[J]. Phytochemistry, 2003, 62(6):971-985.

DOI

[6]
HOUNOUM B M, BLASCO H, EMOND P, et al. Liquid chromatography-high-resolution mass spectrometry-based cell metabolomics:experimental design,recommendations,and applications[J]. TrAC Trends in Analytical Chemistry, 2016, 75:118-128.

DOI

[7]
LUO Z Z, SHEN L H, JIANG J, et al. Plasma metabolite changes in dairy cows during parturition identified using untargeted metabolomics[J]. Journal of Dairy Science, 2019, 102(5):4639-4650.

DOI PMID

[8]
CHEN N H, LACRUE A N, TEUSCHER F, et al. Fatty acid synthesis and pyruvate metabolism pathways remain active in dihydroartemisinin-induced dormant ring stages of Plasmodium falciparum[J]. Antimicrobial Agents and Chemotherapy, 2014, 58(8):4773-4781.

DOI

[9]
BECKER S K, SPONDER G, SANDHU M A, et al. The combined influence of magnesium and insulin on central metabolic functions and expression of genes involved in magnesium homeostasis of cultured bovine adipocytes[J]. International Journal of Molecular Sciences, 2021, 22(11):5897.

DOI

[10]
DRACKLEY J K, OVERTON T R, DOUGLAS G N. Adaptations of glucose and long-chain fatty acid metabolism in liver of dairy cows during the periparturient period[J]. Journal of Dairy Science, 2001, 84(E.Suppl.):E100-E112.

DOI

[11]
ZHANG G S, HAILEMARIAM D, DERVISHI E, et al. Dairy cows affected by ketosis show alterations in innate immunity and lipid and carbohydrate metabolism during the dry off period and postpartum[J]. Research in Veterinary Science, 2016, 107:246-256.

DOI PMID

[12]
HARDIE D G. AMPK:positive and negative regulation,and its role in whole-body energy homeostasis[J]. Current Opinion in Cell Biology, 2015, 33:1-7.

DOI

[13]
MCFADDEN J W. Review:lipid biology in the periparturient dairy cow:contemporary perspectives[J]. Animal, 2020, 14(Suppl.1):s165-s175.

DOI

[14]
LITHERLAND N B, DANN H M, DRACKLEY J K. Prepartum nutrient intake alters palmitate metabolism by liver slices from peripartal dairy cows[J]. Journal of Dairy Science, 2011, 94(4):1928-1940.

DOI PMID

[15]
LIU J, ZHAN G, CHEN D W, et al. UPLC-QTOFMS-based metabolomic analysis of the serum of hypoxic preconditioning mice[J]. Molecular Medicine Reports, 2017, 16(5):6828-6836.

DOI

[16]
SCHÜRCH R, TODESCO L, NOVAKOVA K, et al. The plasma carnitine concentration regulates renal OCTN2 expression and carnitine transport in rats[J]. European Journal of Pharmacology, 2010, 635(1/2/3):171-176.

DOI

[17]
KANG M, YOO H J, KIM M, et al. Metabolomics identifies increases in the acylcarnitine profiles in the plasma of overweight subjects in response to mild weight loss:a randomized,controlled design study[J]. Lipids in Health and Disease, 2018, 17(1):237.

DOI

[18]
VIOLANTE S, IJLST L, TE BRINKE H, et al. Peroxisomes contribute to the acylcarnitine production when the carnitine shuttle is deficient[J]. Biochimica et Biophysica Acta:Molecular and Cell Biology of Lipids, 2013, 1831(9):1467-1474.

[19]
SCHOONEMAN M G, VAZ F M, HOUTEN S M, et al. Acylcarnitines:reflecting or inflicting insulin resistance?[J]. Diabetes, 2013, 62(1):1-8.

DOI

[20]
ANZAI Á, MARCONDES R R, GONÇALVES T H, et al. Impaired branched-chain amino acid metabolism may underlie the nonalcoholic fatty liver disease-like pathology of neonatal testosterone-treated female rats[J]. Scientific Reports, 2017, 7(1):13167.

DOI PMID

[21]
RICO J E, BANDARU V V R, DORSKIND J M, et al. Plasma ceramides are elevated in overweight Holstein dairy cows experiencing greater lipolysis and insulin resistance during the transition from late pregnancy to early lactation[J]. Journal of Dairy Science, 2015, 98(11):7757-7770.

DOI PMID

[22]
KOH A, BÄCKHED F. From association to causality:the role of the gut microbiota and its functional products on host metabolism[J]. Molecular Cell, 2020, 78(4):584-596.

DOI

[23]
MAKRECKA-KUKA M, VOLSKA K, ANTONE U, et al. Trimethylamine N-oxide impairs pyruvate and fatty acid oxidation in cardiac mitochondria[J]. Toxicology Letters, 2017, 267:32-38.

DOI

[24]
GAO X, LIU X F, XU J, et al. Dietary trimethylamine N-oxide exacerbates impaired glucose tolerance in mice fed a high fat diet[J]. Journal of Bioscience and Bioengineering, 2014, 118(4):476-481.

DOI PMID

[25]
VIDELA L A, ALVAREZ S, EVELSON P, et al. Oxidative stress and insulin resistance as interdependent pathogenic mechanisms in non-alcoholic fatty liver disease associated with obesity[J]. Free Radical Pathophysiology, 2006, 12:555-558.

[26]
VIDELA L A, RODRIGO R, ARAYA J, et al. Oxidative stress and depletion of hepatic long-chain polyunsaturated fatty acids may contribute to nonalcoholic fatty liver disease[J]. Free Radical Biology and Medicine, 2004, 37(9):1499-1507.

PMID

[27]
SORDILLO L M, AITKEN S L. Impact of oxidative stress on the health and immune function of dairy cattle[J]. Veterinary Immunology and Immunopathology, 2009, 128(1/2/3):104-109.

DOI

[28]
SONG Y X, LI N, GU J M, et al. β-hydroxybutyrate induces bovine hepatocyte apoptosis via an ROS-p38 signaling pathway[J]. Journal of Dairy Science, 2016, 99(11):9184-9198.

DOI PMID

[29]
THAKARE R, ALAMOUDI J A, GAUTAM N, et al. Species differences in bile acids Ⅱ.Bile acid metabolism[J]. Journal of Applied Toxicology, 2018, 38(10):1336-1352.

DOI

[30]
LI C M, WANG Y R, LI L, et al. Betaine protects against heat exposure-induced oxidative stress and apoptosis in bovine mammary epithelial cells via regulation of ROS production[J]. Cell Stress and Chaperones, 2019, 24(2):453-460.

DOI PMID

[31]
HYDBRING E, MADEJ A, MACDONALD E, et al. Hormonal changes during parturition in heifers and goats are related to the phases and severity of labour[J]. Journal of Endocrinology, 1999, 160(1):75-85.

PMID

[32]
FORSLUND K B, LJUNGVALL O A, JONES B V. Low cortisol levels in blood from dairy cows with ketosis:a field study[J]. Acta Veterinaria Scandinavica, 2010, 52(1):31.

DOI

[33]
GROSS J J, WELLNITZ O, BRUCKMAIER R M. Cortisol secretion in response to metabolic and inflammatory challenges in dairy cows[J]. Journal of Animal Science, 2015, 93(7):3395-3401.

DOI PMID

[34]
SGORLON S, FANZAGO M, GUIATTI D, et al. Factors affecting milk cortisol in mid lactating dairy cows[J]. BMC Veterinary Research, 2015, 11:259.

DOI PMID

[35]
VANNUCCHI C I, RODRIGUES J A, SILVA L C G, et al. Association between birth conditions and glucose and cortisol profiles of periparturient dairy cows and neonatal calves[J]. Veterinary Record, 2015, 176(14):358.

DOI PMID

[36]
靳爽. 不同体况奶牛分娩生理和行为差异以及母牛舔舐对新生犊牛活力的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2020.

JIN S. Differences in delivery physiological and behavior of dairy cows with different body conditions and the effects of cow licking on newborn calves’ vitality[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2020. (in Chinese)

[37]
BEERDA B, KORNALIJNSLIJPER J E, VAN DER WERF J T N, et al. Effects of milk production capacity and metabolic status on HPA function in early postpartum dairy cows[J]. Journal of Dairy Science, 2004, 87(7):2094-2102.

PMID

[38]
STAELS B, HANDELSMAN Y, FONSECA V. Bile acid sequestrants for lipid and glucose control[J]. Current Diabetes Reports, 2010, 10(1):70-77.

DOI PMID

[39]
郭延生, 贾启鹏, 陶金忠. 基于GC-MS策略的奶牛热应激血液代谢组学研究[J]. 畜牧兽医学报, 2015, 46(8):1356-1362.

GUO Y S, JIA Q P, TAO J Z. Blood metabolomic studies of heat stress cow with GC-MS[J]. Acta Veterinaria Et Zootechnica Sinica, 2015, 46(8):1356-1362. (in Chinese)

[40]
JIA W, WEI M L, RAJANI C, et al. Targeting the alternative bile acid synthetic pathway for metabolic diseases[J]. Protein & Cell, 2021, 12(5):411-425.

[41]
DE AGUIAR VALLIM T Q, TARLING E J, AHN H, et al. MAFG is a transcriptional repressor of bile acid synthesis and metabolism[J]. Cell Metabolism, 2015, 21(2):298-311.

DOI PMID

[42]
苏冠宁, 孙赫, 吴高峰, 等. 胆汁酸的肠肝循环及胆汁酸受体在糖脂代谢中的调控作用[J]. 动物营养学报, 2019, 31(8):3511-3521.

SU G N, SUN H, WU G F, et al. Enterohepatic circulation of bile acids and regulation roles of bile acid receptors in glycolipid metabolism[J]. Chinese Journal of Animal Nutrition, 2019, 31(8):3511-3521. (in Chinese)

[43]
LI T G, CHIANG J Y L. Bile acid signaling in liver metabolism and diseases[J]. Journal of Lipids, 2012, 2012:754067.

[44]
MAZALLI M R, BRAGAGNOLO N. Increase of cholesterol oxidation and decrease of PUFA as a result of thermal processing and storage in eggs enriched with n-3 fatty acids[J]. Journal of Agricultural and Food Chemistry, 2009, 57(11):5028-5034.

DOI PMID

文章导航

/