研究论文

补饲开食料对早期断奶牦牛犊牛胸腺和脾脏发育的转录组学分析

  • 郝文君 ,
  • 薛国良 ,
  • 刘书杰 ,
  • 郭文杰 ,
  • 张玉莹 ,
  • 焦洋 ,
  • 崔占鸿 , **
展开
  • 青海大学畜牧兽医科学院,农业农村部青藏高原放牧牦牛藏羊动物营养与饲草料重点实验室,青海省牦牛工程技术研究中心,青海省高原放牧家畜动物营养与饲料科学重点实验室,西宁 810016
** 崔占鸿,副研究员,硕士生导师,E-mail:

*同等贡献作者

郝文君(1997—),女,青海海东人,硕士研究生,从事反刍动物营养与饲料科学研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2022-07-14

  网络出版日期: 2023-02-13

基金资助

国家自然科学基金项目(32260853)

青海省自然科学基金面上项目(2020-ZJ-911)

Transcriptomic Analysis of Starter Feed Supplementation on Thymus and Spleen Development in Early Weaned Yak Calves

  • HAO Wenjun ,
  • XUE Guoliang ,
  • LIU Shujie ,
  • GUO Wenjie ,
  • ZHANG Yuying ,
  • JIAO Yang ,
  • CUI Zhanhong , **
Expand
  • Key Laboratory of Plateau Grazing Animal Nutrition and Feed Science of Qinghai Province, Yak Engineering Technology Research Center of Qinghai Province, Ministry of Agriculture and Rural Affairs Key Laboratory of Animal Nutrition and Forage-Feed of Grazing Yak and Tibetan Sheep in Qinghai-Tibetan Plateau, Qinghai Academy of Animal Husbandry and Veterinary Sciences in Qinghai University, Xining 810016, China
** associate professor, E-mail:

*Contributed equally

Received date: 2022-07-14

  Online published: 2023-02-13

摘要

本试验旨在解析补饲开食料对早期断奶牦牛犊牛胸腺和脾脏部分免疫功能的调节机制。选取出生日龄和体重相近、健康的大通牦牛犊牛(公)20头,随机等分为2组,即对照组(CON组)和试验组(SS组)。CON组犊牛饲喂代乳粉和苜蓿干草,SS组犊牛在CON组的基础上补饲开食料,2组每天代乳粉饲喂量相同,CON组饲喂的苜蓿干草和SS组饲喂的苜蓿干草+开食料的干物质量相同。当牦牛犊牛固体物质的干物质采食量达到1 kg/d时,2组牦牛犊牛各屠宰5头,采取胸腺、脾脏组织进行转录组学测序与比较分析。预试期为30 d,正式试验期100 d。结果表明:1)与CON组相比,补饲开食料显著提高了早期断奶牦牛犊牛的平均日增重和干物质采食量(P<0.05),显著降低了料重比(P<0.05),改善了牦牛犊牛的生长性能。2)胸腺的转录组学测序与定量验证表明,SS组与CON组胸腺组织对比有2 004个差异基因,其中有793个是上调基因,1 211个是下调基因;GO功能富集分析结果显示,差异表达基因(DEGs)注释到796条GO条目,其中生物过程(BP)类别414条,细胞组成(CC)类别100条,分子功能(MF)类别282条;京都基因和基因组百科全书(KEGG)分析结果显示,SS组与CON组胸腺组织共富集到差异信号通路38个,补饲开食料主要通过下调磷脂酰肌醇-3-激酶和蛋白激酶B(PI3K-Akt)信号通路和上调核因子-κB(NF-κB)信号通路增强牦牛犊牛胸腺的免疫功能。3)脾脏的转录组学测序与定量验证表明,SS组和CON组脾脏组织对比有772个差异基因,其中有389个是上调基因,383个是下调基因;GO功能富集分析结果显示,DEGs注释到582条GO条目,其中BP类别331条,CC类别201条,MF类别50条;KEGG分析结果显示,SS组与CON组脾脏组织共富集到13条差异信号通路,补饲开食料主要通过上调补体和凝血级联、抗原处理和呈递路径增强脾脏的免疫机能。4)牦牛犊牛胸腺和脾脏组织实时荧光定量PCR结果与测序结果一致,表明测序结果准确。综上所述,补饲开食料能增加早期断奶牦牛犊牛的营养摄入水平,提高其生长性能;补饲开食料主要通过下调PI3K-Akt信号通路和上调NF-κB信号通路来启动免疫反应,增强胸腺的部分免疫机能;补饲开食料通过上调抗原处理和呈递、补体和凝血级联等信号通路来增强脾脏的细胞免疫,加强机体对炎症的抵御能力。

本文引用格式

郝文君 , 薛国良 , 刘书杰 , 郭文杰 , 张玉莹 , 焦洋 , 崔占鸿 . 补饲开食料对早期断奶牦牛犊牛胸腺和脾脏发育的转录组学分析[J]. 动物营养学报, 2023 , 35(2) : 977 -994 . DOI: 10.12418/CJAN2023.094

Abstract

Aiming to analyze the mechanism of regulation of immune function of thymus and spleen parts in early weaned yak calves by supplemental feeding of starter feed. A total of 20 healthy male Datong yak calves with similar birth age and weight were selected and randomly assigned to 2 groups, namely, the control group (CON group) and the experimental group (SS group). Calves in the CON group were fed milk replacer and alfalfa hay, the calves in SS group were fed the starter feed based on the CON group, Both groups were fed the same amount of milk replacer per day, and the dry matter mass of alfalfa hay fed to the CON group and alfalfa hay+starter feed fed to the SS group were the same. When the dry matter intake of yak calves reached about 1 kg/d, 5 calves from each group were slaughtered. Thymus and spleen tissues were taken for transcriptome sequencing and comparative analysis. Result showed as follows: 1) supplemental starter feed significantly increased the daily weight gain and dry matter intake of early weaned yaks and calves (P<0.05), reduced the feed to gain ratio (P<0.05), and improved the growth performance of yaks and calves. 2) Transcriptional sequencing and quantitative verification of thymus showed that there were 2 004 differentially expressed genes in thymus of yak calves in two groups, of which 793 were up-regulated genes and 1 211 were down-regulated. GO functional enrichment analysis showed that differentially expressed genes (DEGs) were annotated to 796 GO entries, including 414 entries in the biological process (BP) category, 100 entries in the cellular composition (CC) category, and 282 entries in the molecular function (MF) category; the results of KEGG analysis showed that a total of 38 differential signaling pathways were enriched in the thymus tissue in SS and CON groups (P<0.05). Starter feed supplementation could enhance the immune function of yak calves of thymus by down-regulating phosphatidylinositol-3-kinase and protein kinase B (PI3K-Akt) signal pathway and up-regulating nuclear factor-κB (NF-κB) signal pathway. 3) Transcriptional sequencing and quantitative verification of showed that there were 772 differentially expressed genes in the spleen of yak calves in two groups, among which 389 were up-regulated genes and 383 were down-regulated genes. The results of GO function enrichment analysis showed that DEGs annotated to 582 GO entries, including 331 entries in BP category, 201 entries in CC category and 50 entries in MF category. The results of KEGG analysis showed that the spleen tissues in SS group and CON group were enriched to 13 differential signal pathways (P<0.05), starter feed supplementation could enhance the immune function of spleen mainly by up-regulating complement and coagulation cascade and antigen processing and presentation. 4) Real-time PCR results of thymus and spleen tissues of yak calves were consistent with the sequencing results, which indicated that the sequencing results were accurate. In summary, it is concluded that starter feed supplementation can increase the protein intake level of early weaned yak calves and improve their growth performance. At the same time, supplemental starter feed may mainly initiate the immune response by down-regulating the PI3K-Akt signal pathway and up-regulating NF-κB signal pathway, and enhance part of the immune function of the thymus. Supplemental starter feed may enhance the cellular immunity of the spleen and strengthen the body’s resistance to inflammation by upregulating signal pathways such as antigen processing and presentation, complement and coagulation cascade.

牦牛是青藏高原的优势家畜,被誉为“高原之舟”,是牧民生产、生活和经济的重要来源之一[1]。每年4~6月,母牦牛集中产犊,犊牛出生后采用随母哺乳放牧的饲喂方式进行早期培育[2]。母牦牛日平均产乳量仅为1.75 kg,且随着青藏高原进入冷季,牧草的质量和数量急剧下降,母乳和牧草中的营养物质供给不足,不能满足犊牛的生长发育需求[3],导致免疫系统发育不全,进而影响犊牛对应激以及疾病的抵抗力和恢复力[4-5]。犊牛易发各种疾病,使犊牛的早期生长发育质量降低,影响牦牛犊牛的高效培育[6]
营养与免疫存在着紧密的联系,营养水平的高低影响动物机体的免疫力,动物免疫力高低又影响动物的生长性能[7]。在免疫系统建立建全过程中营养物质至关重要[8]。哺乳动物幼畜时期,营养供给失调时,机体首先会保证脑组织的发育和保证机体存活,而胸腺等发育较快的器官会重量减轻,对胸腺造成实质性损伤,进而影响其免疫功能[9]。机体营养不良时,脾脏血管周围免疫细胞数量减少,不同程度损害单核巨噬细胞的游走功能,影响脾脏的免疫和消化功能[10]。胸腺和脾脏作为机体重要的免疫器官,对于机体整体免疫状态具有重要意义。开食料是断奶前后为满足犊牛或羔羊生长发育需要专门配制的混合精料,对犊牛由液体向固体饲料过渡、早期断奶和后期生长发育有着重要意义[11]。转录组测序是指利用高通量测序方法,研究特定的细胞、组织或个体在特定时间和状态下所转录出的所有mRNA,用于揭示不同功能状态下的基因表达、结构的差异,阐明分子机制[12]。目前有关转录组学揭示补饲开食料提高牦牛犊牛胸腺和脾脏免疫机能的影响的报道很少。因此,本研究以早期断奶的牦牛犊牛为研究对象,以开食料为切入点,应用转录组学技术探究补饲开食料提高牦牛犊牛胸腺和脾脏部分免疫机能的相关机制,以期为后期牦牛犊牛早期健康培育提供理论指导。

1 材料与方法

1.1 试验地点与时间

牦牛犊牛购自青海省大通牛场,饲养试验在青海省海北州海晏县高原现代生态畜牧业科技试验示范园进行。试验期为2020年7月14日至2020年11月21日,共计130 d,预试期为30 d,正式试验期100 d。

1.2 试验设计及饲养管理

选取20头出生日龄[(30±4)日龄]及体重[(30.79±3.43) kg]相近、健康的大通牦牛犊牛(公),随机分为2组。对照组(CON组)饲喂代乳粉和苜蓿干草,试验组(SS组)在CON组的基础上补饲开食料,2组每天代乳粉饲喂量相同,CON组饲喂的苜蓿干草和SS组饲喂的苜蓿干草+开食料的干物质量相同,当固体物质的干物质采食量达到1 kg时(此时犊牛在160日龄左右),牦牛犊牛断奶,2组各屠宰5头牦牛犊牛。
代乳粉饲喂时间为每日08:00、14:00和17:00,用煮沸后冷却到42 ℃的温水按代乳粉和水1∶5的比例冲泡进行饲喂。试验正式开始时,代乳粉饲喂量为0.48 kg/(头·d),代乳粉每5 d增加0.01 kg,饲喂方法与郭文杰等[5]一致;试验结束时,代乳粉饲喂量为0.72 kg/(头·d)。30~80日龄SS组牦牛犊牛按苜蓿干草与开食料2∶1比例饲喂,81~160日龄SS组牦牛犊牛按苜蓿干草与开食料1∶1比例饲喂,试验饲粮营养水平见表1,不同日龄饲粮组成及营养水平见表2。试验犊牛为单圈饲养,圈舍始终保持卫生良好,通风良好,定期消毒。代乳粉和开食料均采购自北京精准动物营养研究中心。
表1 试验饲粮营养水平(干物质基础)

Table 1 Nutrient levels of experimental diets (DM basis)%

项目
Items
粗蛋白质
CP
粗脂肪
EE
中性洗涤纤维
NDF
酸性洗涤纤维
ADF

Ca

P
代乳粉 MR 26.24 27.90 2.50 1.40
苜蓿干草 AH 12.50 0.90 56.45 40.40 0.98 0.18
开食料 SC 20.00 4.70 10.90 4.10 0.80 0.45

实测值。

Measured values.

表2 不同日龄饲粮组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of diets for different ages (DM basis)%

项目
Items
30~80日龄 30 to 80 days of age 81~160日龄 81 to 160 days of age
对照组 CON group 试验组 SS group 对照组 CON group 试验组 SS group
代乳粉 MR 51.21 51.21 37.63 37.63
苜蓿干草 AH 48.79 32.53 62.37 31.19
开食料SC 16.26 31.18
合计 Total 100.00 100.00 100.00 100.00
营养水平 Nutrient levels
粗蛋白质 CP 19.54 20.76 17.67 20.01
粗脂肪 EE 14.72 15.34 11.06 12.25
中性洗涤纤维 NDF 27.54 20.13 35.21 21.01
酸性洗涤纤维 ADF 19.71 13.81 25.20 13.88
钙 Ca 1.76 1.73 1.55 1.50
磷 P 0.80 0.85 0.64 0.72

营养水平均为计算值。

Nutrient levels were all calculated values.

1.3 样品采集及测定指标

1.3.1 采食量和体重

正式试验期第1天和第100天晨饲前称量牦牛犊牛体重,计算平均日增重(ADG),每日记录牦牛犊牛的采食量,计算平均日采食量(ADFI)和料重比(F/G)。
平均日增重=(初始体重-终末体重)/试验天数;
料重比=平均日采食量/平均日增重。

1.3.2 转录组文库构建及测序

牦牛犊牛屠宰前1天禁食,屠宰10头牦牛犊牛,采取脾脏和胸腺组织,放入液氮中保存,待测。将10头牦牛犊牛胸腺和脾脏组织样品送至北京诺禾致源科技股份有限公司进行转录组测序,使用动物Trizol(Ambion/Invitrogen,美国)总RNA提取试剂盒提取样本的总RNA,随后对RNA样品进行严格质控,质控方式主要是通过Agilent 2100 Bioanalyzer精确检测RNA完整性,总RNA质检合格后,构建文库。先使用Qubit2.0 Fluorometer进行初步定量,稀释文库至1.5 ng/μL,随后使用Agilent 2100 Bioanalyzer对文库的insert size进行检测,insert size符合预期后,利用Illumina NovaSeq 6000(Illumina,美国)进行双端测序,得到测序数据。

1.3.3 参考基因组序列比对

测序数据进行质量评估后得到质控数据,在HISAT2软件上与野牦牛参考基因组(Bos_mutus_GCF_000298366.1)对比,得到样本基因。

1.3.4 差异表达基因(DEGs)筛选注释及实时荧光定量PCR (qRT-PCR)验证

用DESeq R软件包(1.10.1)分析转录组在条件不同时的差异表达,计算log2 FC及其统计检验的P值,以P-adjust≤0.05和|log2 FC|≥1为标准筛选DEGs。通过GO数据库和京都基因和基因组百科全书(KEGG)数据库进行基因功能注释分析,分析DEGs参与的信号通路。
从脾脏和胸腺DEGs中各随机挑选出5个基因进行实时荧光定量PCR验证,使用动物Trizol(TaKaRa)总RNA提取试剂盒提取样本的总RNA(具体操作流程按照试剂盒进行),反转录成cDNA,将cDNA稀释成50 ng/μL,进行qRT-PCR。引物均由杨凌天润奥科生物科技有限公司合成。仪器为ABI OuantStudio 6 qRT-PCR仪。反应程序为:预变性95 ℃ 30 s;扩增95 ℃ 5 s,60 ℃ 35 s,40个循环;采用2-ΔΔCt法分析基因的相对表达量,以β-肌动蛋白(β-actin)作为内参基因,用Primer3 Plus网站设计定量PCR引物序列,每个样本3次生物学重复。表3为胸腺组织qRT-PCR所用引物,表4为脾脏组织qRT-PCR所用引物。
表3 胸腺组织qRT-PCR所用引物

Table 3 Primers used for qRT-PCR of thymus

序号
No.
引物名称
Primer name
引物序列
Primer sequence (5'—3')
片段长度
Fragment length/bp
1 Toll样受体4
TLR4
F:AATTTGCCAAGGAGCCTCAC
R:CCACTGCAGGAAACTCTGATG
84
2 脂多糖结合蛋白
LBP
F:CAAACTCTGCCAGTCACAACAG
R:AGCATTTGGGCTGTTGCTTG
89
3 磷脂酰肌醇-3-激酶
PI3K
F:AATGCGCAGATTCAGTGAGG
R:ACAGCCACAATGAGCTTTCC
150
4 肿瘤坏死因子受体超家族成员5
CD40
F:TGTCACCGTTGGACAAGTTG
R:TGGAAACCGCAGACAACATC
86
5 肿瘤坏死因子-α
TNF-α
F:AGCACCAAAAGCATGATCCG
R:TGAGGCACAAGCAACTTCTG
97
6 β-肌动蛋白
β-actin
F:GGTCACTCACACTGTACCCA
R:AAGCTGTAGCCTCGTTCTGT
126
表4 脾脏组织qRT-PCR所用引物

Table 4 Primers used for qRT-PCR of spleen

序号
No.
引物名称
Primer name
引物序列
Primer sequence (5'—3')
片段长度
Fragment length/bp
1 热激蛋白70
HSP70
F:TCACCATCACCAACGACAAG
R:TCATGTTGAAGGCGTACGAC
147
2 NADH脱氢酶亚单位6
ND6
F:TACTGTTCCGTAGCCATAGCC
R:TGGGGTTGGTTGTGGAATTG
126
3 C3a型过敏性毒素趋化受体
C3AR1
F:TTGCCAGTGTCTTCTTGCTG
R:TTCCCACGTTGCGATGATTC
93
4 母体单倍体Ⅰ类分子
MHⅠ
F:ACCATGGGCATCATTGTTGG
R:TTCACCTGAGTGCTTCTTCCTC
96
5 T细胞表面糖蛋白CD8β链
CD8B
F:AACCCGGGTGACTCAGAAAC
R:ACCCAAGGACACCAGAAGAATC
91
6 β-肌动蛋白
β-actin
F:GGTCACTCACACTGTACCCA
R:AAGCTGTAGCCTCGTTCTGT
126

1.4 数据处理与统计分析

使用Excel 2019初步处理数据,采用SPSS 20.0统计软件单因素方差分析(one-way ANOVA)比较数据差异性,用t检验进行组间比较,结果用平均值±标准差表示,以P<0.05表示具有显著性差异。

2 结果与分析

2.1 补饲开食料对早期断奶牦牛犊牛生长性能的影响

表5可知,SS组牦牛犊牛平均日采食量、净增重和平均日增重均显著高于CON组(P<0.05),SS组牦牛犊牛料重比显著低于CON组(P<0.05)。
表5 补饲开食料对早期断奶牦牛犊牛生长性能的影响

Table 5 Effects of starter feed supplementation on growth performance of early weaned yak calves

项目 Items 对照组 CON group 试验组 SS group PP-value
初始体重 IBW/kg 28.72±3.14 30.52±2.77 0.261
终末体重 FBW/kg 69.15±2.44b 79.16±2.86a <0.001
净增重 NW/kg 40.43±2.75b 48.64±2.57a 0.018
平均日增重 ADG/(kg/d) 0.40±0.03b 0.48±0.03a 0.018
平均日采食量 ADFI/(kg/d) 1.19±0.08b 1.30±0.03a 0.002
料重比 F/G 2.97±0.01a 2.71±0.09b 0.008

同行数据肩注不同小写字母表示差异显著(P<0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05).

2.2 补饲开食料对早期断奶牦牛犊牛的转录组测序数据分析

2.2.1 碱基质量分布检查

检测原始序列错误率分布情况,Illumina的碱基质量值用Qphred表示。牦牛胸腺、脾脏组织样品的Q20均在96.52%以上,说明在测序时正确识别率大于99%的碱基总数占所测定的碱基总数的96.52%;Q30均在91.03%以上,说明在测序时正确识别率大于99%的碱基总数占所测定的碱基总数的91.03%。测序结果显示,每个胸腺、脾脏组织样品的clean bases总数均大于6.09 G,GC含量在48.71%~50.49%,表明测序质量较高,结果较可靠。

2.2.2 测序数据比对分析

将每个胸腺、脾脏组织样品的clean reads与参考基因组对比,定位到基因组上的测序序列的比例大于92.33%,每个胸腺组织样品测序的clean reads与参考基因组的比对率均达到90.11%以,说明测序结果可靠,可以用于后续分析。

2.2.3 主成分分析(PCA)

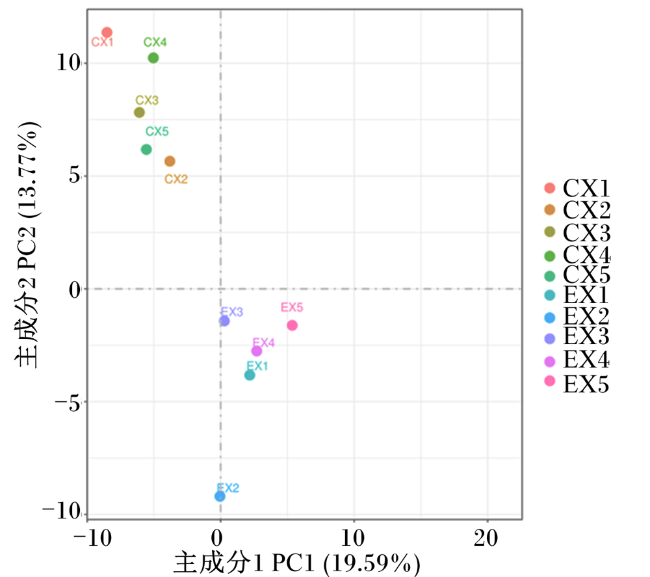
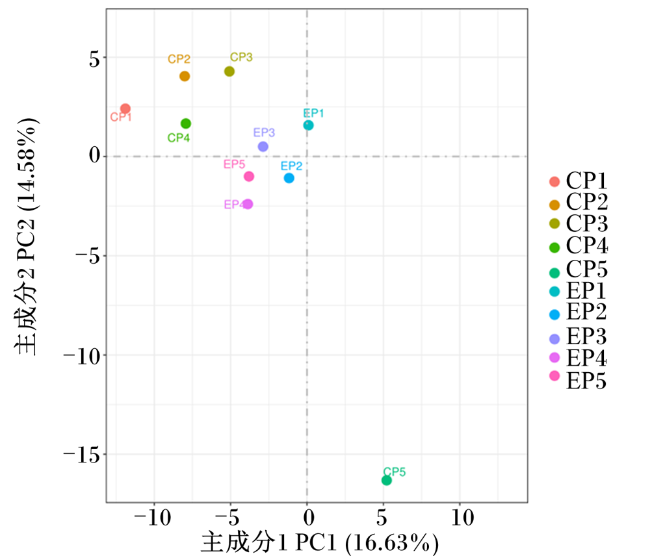
所有样本的基因表达值(FPKM)进行PCA,如下图1所示,胸腺组织组内样本聚在一起,组间样本分散,说明胸腺组织样品重复性较好。如下图2所示,脾脏组织、胸腺组织组内样本聚在一起,组间样本分散(CP5样本分散较开,后续分析中已剔除),说明脾脏组织样品重复性较好,二者都可进行后续分析。
图1 牦牛犊牛胸腺组织PCA

CX1、CX2、CX3、CX4和CX5为CON组5头牦牛犊牛胸腺组织样本,EX1、EX2、EX3、EX4和EX5为SS组5头牦牛犊牛胸腺组织样本。

Fig.1 PCA of thymus tissue of yak calves

CX2, CX3, CX4 and CX5 are thymus tissue samples of five yak calves in CON group, and EX1, EX2, EX3, EX4 and EX5 are thymus tissue samples of five yak calves in SS group.

图2 牦牛犊牛脾脏组织PCA

CP1、CP2、CP3、CP4和CP5为CON组5头牦牛犊牛脾脏组织样本,EP1、EP2、EP3、EP4和EP5为SS组5头牦牛犊牛脾脏组织样本。

Fig.2 PCA of spleen tissue of yak calves

CP1,CP2,CP3,CP4 and CP5 are spleen tissue samples of five yak calves in CON group, and EP1,EP2,EP3,EP4 and EP5 are spleen tissue samples of five yak calves in SS group.

2.3 DEGs分析及筛选

2.3.1 牦牛犊牛胸腺基因差异表达及筛选

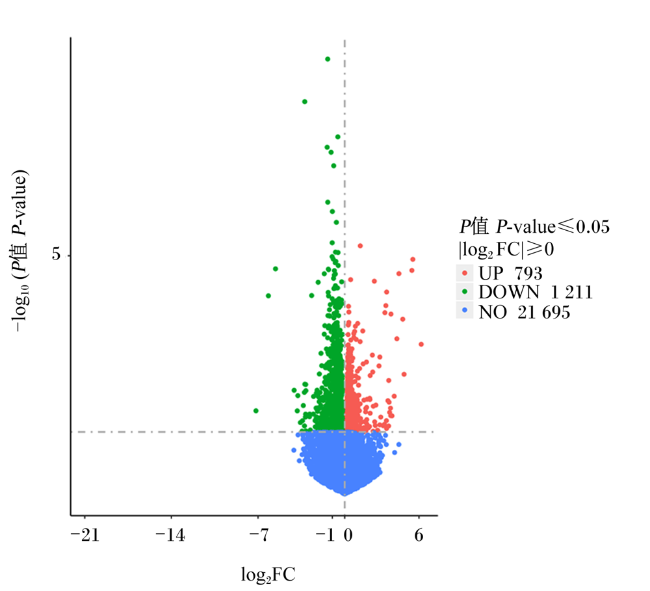
根据P-adjust≤0.05和|log2 FC|≥1标准筛选样本的DEGs,由图3可知,SS组与CON组胸腺对比有2 004个DEGs,其中有793个是上调基因,1 211个是下调基因。
图3 胸腺差异表达基因火山图

图中横坐标表示差异倍数;纵坐标表示差异结果的显著性;EX:SS组胸腺;CX:CON组胸腺;UP:显著上调;DOWN:显著下调;NO:不显著。

Fig.3 Volcano map of DEGs of thymus

The abscissa in the figure represents the difference multiple; the ordinate indicates the significance of the difference results; EX: thymus gland in SS group; CX: thymus of CON group; UP: significantly increased; DOWN: significantly down; NO: not significant.

2.3.2 牦牛犊牛脾脏差异基因表达及筛选

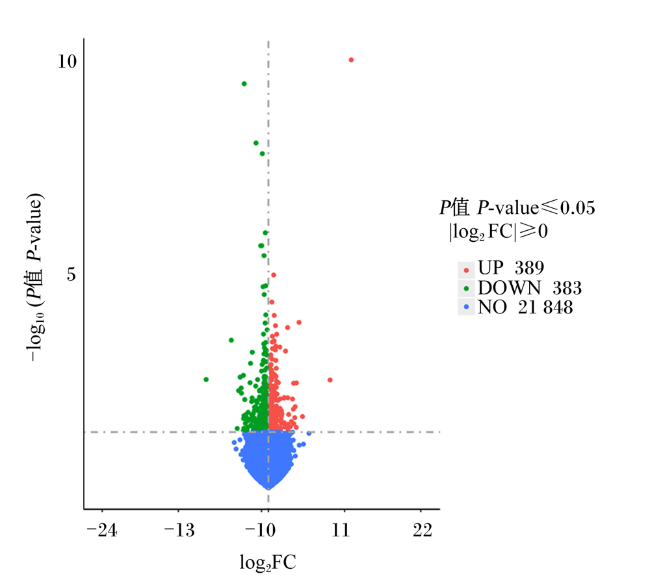
根据P-adjust≤0.05和|log2 FC|≥1标准筛选样本的DEGs,由图4可知,SS组与CON组脾脏对比有772个DEGs,其中有389个是上调基因,383个是下调基因。
图4 脾脏差异表达基因火山图

图中横坐标表示差异倍数;纵坐标表示差异结果的显著性;EX:SS组脾脏;CX:CON组脾脏;UP:显著上调;DOWN:显著下调;NO:不显著。

Fig.4 Volcano map of DEGs of spleen

The abscissa in the figure represents the difference multiple; the ordinate indicates the significance of the difference results; EX: spleen in SS group; CX: spleen in CON group; UP: significantly increased; DOWN: significantly down; NO: not significant.

2.4 GO聚类分析

2.4.1 牦牛犊牛胸腺差异基因的GO富集分析

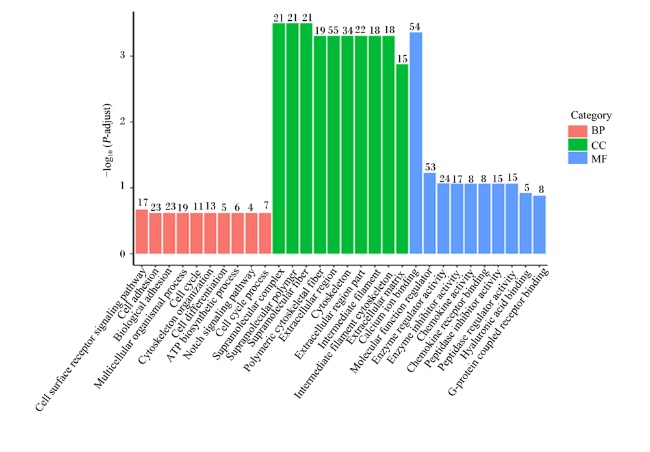
P-adjust<0.05作为显著性富集的阈值,进行GO功能富集分析,图5为SS组和CON组胸腺差异基因GO富集情况,从图中可以看出DEGs在生物过程(biological process,BP)、细胞组分(cellular component,CC)和分子功能(molecular function,MF)三大类上均有所富集,DEGs注释到796条GO条目,其中BP类别414条,CC类别100条,MF类别282条。在BP功能中,2组间胸腺的DEGs在细胞表面受体信号通路、细胞黏附、生物黏附、多细胞生物过程、细胞周期、细胞骨架组织、细胞分化、三磷酸腺苷生物合成过程、Notch信号通路、细胞周期过程等富集最多;在CC功能中,2组间胸腺DEGs在超分子复合物、超分子聚合物、超分子纤维、聚合细胞骨架纤维、细胞外区域、细胞骨架、细胞外区域部分、中间丝、中间丝细胞骨架等富集最多;在MF功能中,2组间胸腺DEGs在钙离子结合、分子功能调节剂、酶调节剂活性、酶抑制剂活性、趋化因子活性、趋化因子受体结合、肽酶抑制剂活性、肽酶调节活性、透明质酸结合、G蛋白偶联受体结合等方面富集最多。
图5 胸腺差异表达基因GO富集分析

Category:类别;BP:生物过程 biological process;CC:细胞组分 component of cell;MF:分子功能 molecular function;P-adjust: P值矫正之后的数值 The P-value is the value after correction; Cell surface receptor signaling pathway:细胞表面受体信号通路;Cell adhesion:细胞黏附;Biological adhesion:生物黏附;Multicellular organismal process:多细胞生物过程;Cell cycle:细胞周期;Cytoskeleton organization:细胞骨架组织;Cell differentiation:细胞分化;ATP biosynthetic process:ATP生物合成过程;Notch signaling pathway:Notch信号通路;Cell cycle process:细胞周期过程;Supramolecular complex:超分子复合物;Supramolecular polymer:超分子聚合物;Supramolecular fiber:超分子纤维;Polymeric cytoskeletal fiber:聚合细胞骨架纤维;Extracellular region:细胞外区域;Cytoskeleton:细胞骨架;Extracellular region part:胞外区部分;Intermediate filament:中间丝;Intermediate filament cytoskeleton:中间丝细胞骨架;Extracellular matrix:细胞外基质;Calcium ion binding:钙离子结合;Molecular function regulator:分子功能调节剂;Enzyme regulator activity:酶调节活性;Enzyme inhibitor activity:酶抑制剂活性;Chemokine activity:趋化因子活性;Chemokine receptor binding:趋化因子受体结合;Peptidase inhibitor activity:肽酶抑制剂活性;Peptidase regulator activity:肽酶调节剂活性;Hyaluronic acid binding:透明质酸结合;G-protein coupled receptor binding:G蛋白偶联受体结合。

Fig.5 GO enrichment analysis of DEGs of thymus

2.4.2 牦牛犊牛脾脏差异表达基因的GO富集分析

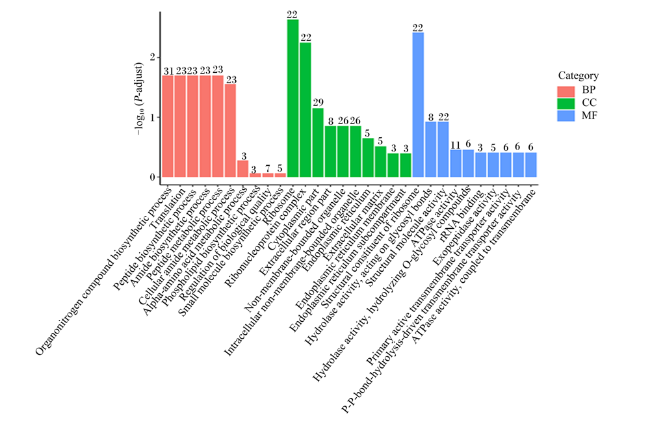
图6可知,以P-adjust<0.05作为显著性富集的阈值,进行GO功能富集分析,SS组和CON组脾脏间的DEGs注释到582条GO条目,其中BP类别331条,CC类别201条,MF类别50条。在BP功能中,2组间脾脏的DEGs在有机氮化合物生物合成方法、翻译、肽生物合成过程、酰胺生物合成过程、肽代谢过程、细胞酰胺代谢过程等过程富集最多;在CC功能中,2组间脾脏DEGs在核糖体、核糖核蛋白复合物、细胞质部分、细胞外区域部分、非膜界细胞器、细胞内非膜界细胞器等富集最多;在MF功能中,2组间脾脏DEGs在核糖体的结构成分、作用于糖苷键的水解酶活性、结构分子活性、三磷酸腺苷酶活性等富集最多。
图6 脾脏差异表达基因GO富集分析

Category:类别;BP:生物过程 biological process;CC:细胞组分 component of cell;MF:分子功能 molecular function;P-adjust: P值矫正之后的数值 The P-value is the value after correction; Organonitrogen compound biosynthetic process:有机氮化合物生物合成过程;Translation:翻译;Peptide biosynthetic process:肽生物合成过程;Amide biosynthetic process:酰胺生物合成过程;Peptide metabolic process:肽代谢过程;Cellular amide metabolic process:细胞酰胺代谢过程;Alpha-amino acid metabolic process: α-氨基酸代谢过程;Phospholipid biosynthetic process:磷脂生物合成过程;Regulation of biological quality:生物质量;Small molecule biosynthetic process:小分子生物合成过程的调控;Ribosome:核糖体;Ribonucleoprotein complex:核糖核蛋白复合体;Cytoplasmic part:细胞质部分;Extracellular region part:胞外区部分;Non-membrane-bounded organelle:非膜界细胞器;Intracellular non-membrane-bounded organelle:细胞内非膜界细胞器;Endoplasmic reticulum:内质网;Extracellular matrix:细胞外基质;Endoplasmic reticulum membrane:内质网膜;Endoplasmic reticulum subcompartment:内质网亚室;Structural constituent of ribosome:核糖体的结构成分;Hydrolase activity, acting on glycosyl bonds:作用于糖苷键的水解酶活性;Structural molecule activity:结构分子活性;ATPase activity: ATP酶活性;Hydrolase activity, hydrolyzing O-glycosyl compounds:水解酶活性,水解O-糖基化合物;rRNA binding: rRNA结合;Exopeptidase activity:外肽酶活性;Primary active transmembrane transporter activity:初级活性跨膜转运蛋白活性;P-P-bond-hydrolysis-driven transmembrane transporter activity: P-P-键水解驱动的跨膜转运活性;ATPase activity, coupled to transmembrane: ATP酶活性,偶联到跨膜。

Fig.6 GO enrichment analysis of DEGs of spleen

2.5 KEGG富集分析

2.5.1 牦牛犊牛胸腺差异表达基因的KEGG富集分析
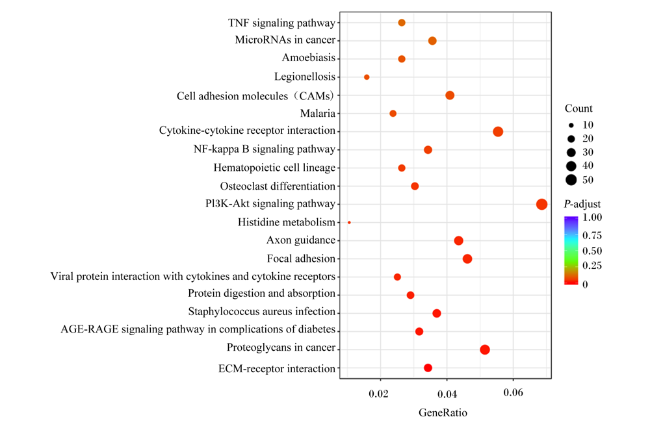
将DEGs进行KEGG Pathway富集分析,如图7所示,SS组与CON组胸腺共富集到38条差异信号通路,DEGs主要参与细胞外基质(ECM)-受体相互作用、癌症中的蛋白多糖、糖尿病并发症中的糖基化终产物及其受体(AGE-RAGE)信号通路、金黄色葡萄球菌感染、蛋白质消化和吸收、病毒蛋白与细胞因子和细胞因子受体的相互作用、焦点黏附、轴突导向、组氨酸代谢、磷脂酰肌醇-3-激酶和蛋白激酶B(PI3K-Akt)信号通路、破骨细胞分化等代谢途径、造血细胞谱系、核因子-κB(NF-κB)信号通路、细胞因子-细胞因子受体相互作用、疟疾、细胞黏附分子、军团杆菌病、阿米巴病、癌症中的微小核糖核酸、肿瘤坏死因子信号通路等信号通路。
图7 胸腺组织差异表达基因KEGG通路富集分析

GeneRatio:表示该通路中差异基因富集程度 represents the enrichment degree of differential genes in this pathway;Count:总量;P-adjust:P值矫正之后的数值 the P-value is the value after correction;TNF signaling pathway:肿瘤坏死因子信号通路;MicroRNAs in cancer:癌症中的微RNAs;Amoebiasis:阿米巴病;Legionellosis:军团杆菌病;Cell adhesion molecules (CAMs):细胞黏附分子;Malaria:疟疾;Cytokine-cytokine receptor interaction:细胞因子-细胞因子受体相互作用;NF-kappa B signaling pathway: NF-κB信号通路;Hematopoietic cell lineage:造血细胞谱系;Osteoclast differentiation:破骨细胞分化;Pl3K-Akt signaling pathway:Pl3K-Akt信号通路;Histidine metabolism:组氨酸代谢;Axon guidance:轴突导向;Focal adhesion:焦点黏附;Viral protein interaction with cytokines and cytokine receptors:病毒蛋白与细胞因子和细胞因子受体的相互作用;Protein digestion and absorption:蛋白质的消化和吸收;Staphylococcus aureus infection:金黄色葡萄球菌感染;AGE-RAGE signaling pathway in complications of diabetes:糖尿病并发症中的AGE-RAGE信号通路;Proteoglycans in cancer:癌症中的蛋白多糖;ECM-receptor interaction: ECM-受体相互作用。

Fig.7 KEGG pathway enrichment analysis of DEGs of thymus

其中与免疫相关的主要信号通路有PI3K-Akt信号通路、NF-κB信号通路、肿瘤坏死因子信号通路等信号通路。表6为SS组和CON组胸腺组织主要免疫信号通路对应的DEGs。PI3K-Akt信号通路中DEGs数有52个,其中上调的基因主要有白细胞介素-2(IL-2)、白细胞介素-4(IL-4)、白细胞介素-6(IL-6)、磷脂酰肌醇-3-激酶(PI3K)、G蛋白βγ亚基(Gβγ)和G蛋白偶联受体(GPCR)等,下调的基因主要有Toll样受体2(TLR2)、Toll样受体4(TLR4)和ECM等;NF-κB信号通路中DEGs数有42个,其中上调的基因主要有肿瘤坏死因子-α(TNF-α)、脂多糖结合蛋白(LBP)、T细胞受体(TCR)、泛素结合酶(ELC)和细胞间黏附分子(ICAM)等,下调的基因主要有肿瘤坏死因子受体超家族成员5(CD40)、肿瘤坏死因子受体作用因子3(TRAF3)、肿瘤坏死因子β-R(LT-βR)和TLR4等。
表6 SS组和CON组胸腺主要免疫信号通路对应的差异表达基因

Table 6 DEGs corresponding to major immune signal pathways of thymus in SS and CON groups

KEGG通路名称
KEGG pathway name
差异表达基因数
Number of DEGs/个
主要差异表达基因名称
Main DEGs name
调节
Regulate
磷脂酰肌醇-3-激酶和
蛋白激酶B信号通路
PI3K-Akt signaling pathway
52 IL-2、IL-4、IL-6、GβγGPCR
TLR2、TLR4、ECMPI3K
上调
下调
核因子-κB信号通路
NF-kappa B signaling pathway
42 TNF-αLBPTCRELCICAM
CD40、TRAF3、LT-βRTLR4
上调
下调

IL-2:白细胞介素-2 interleukin-2;IL-4:白细胞介素-4 interleukin-4;IL-6:白细胞介素-6 interleukin-6;Gβγ:G蛋白βγ亚基G protein βγ subunit ;GPCR:G蛋白偶联受体 G-protein-coupled receptors;TLR2:Toll样受体2 Toll-like receptor 2;TLR4:Toll样受体4 Toll-like receptor 4;ECM:细胞外基质 extracellular matrix;PI3K:磷脂酰肌醇-3-激酶 intracellular phosphatidylinositol kinase;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;LBP:脂多糖结合蛋白 LPS-binding protein;TCR:T细胞受体 T cell receptor;ELC:泛素结合酶 ubiquitin-conjugating enzyme;ICAM:细胞间黏附分子 intercellular adhesion molecule;CD40:肿瘤坏死因子受体超家族成员5 tumor necrosis factor receptor superfamily member 5;TRAF3:肿瘤坏死因子受体作用因子3 tumor necrosis factor receptor acting factor 3;LT-βR:肿瘤坏死因子β-R tumor necrosis factor β-R。

2.5.2 牦牛犊牛脾脏差异表达基因的KEGG富集分析

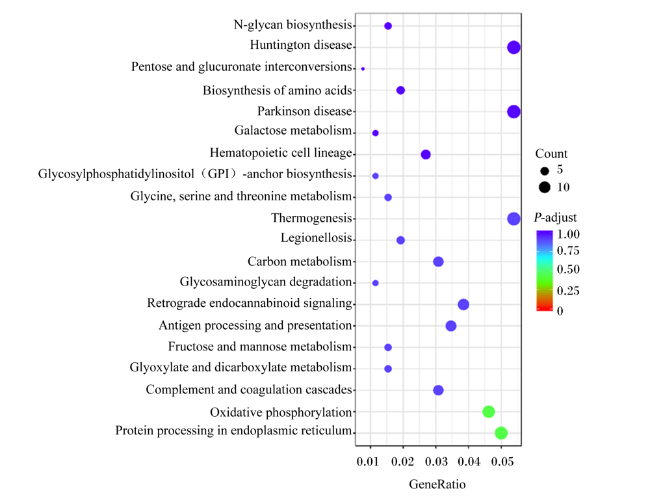
图8所示,SS组与CON组脾脏组织共富集到13条差异信号通路,DEGs主要参与内质网中的蛋白质加工、氧化磷酸化、补体和凝血级联、乙醛酸盐和二羧酸盐代谢、果糖和甘露糖代谢、抗原处理和呈递、逆行内源性大麻素信号、糖胺聚糖降解、碳代谢、军团杆菌病、生热作用、甘氨酸、丝氨酸和苏氨酸代谢、糖基磷脂酰肌醇-锚生物合成等信号通路。
图8 脾脏组织差异表达基因KEGG通路富集

GeneRatio:表示该通路中差异基因富集程度 represents the enrichment degree of differential genes in this pathway;Count:总量;P-adjust:P值矫正之后的数值 the P-value is the value after correction;N-glycan biosynthesis:N-聚糖的生物合成;Huntington disease:亨廷顿病;Pentose and glucuronate interconversions:戊糖和葡萄糖醛酸的相互转化;Biosynthesis of amino acids:氨基酸的生物合成;Parkinson disease:帕金森病;Galactose metabolism:半乳糖代谢;Hematopoietic cell lineage:造血细胞谱系;Glycosylphosphatidylinositol (GPI)-anchor biosynthesis:糖基磷脂酰肌醇(GPI)-锚生物合成;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Thermogenesis:生热作用;Legionellosis:军团杆菌病;Carbon metabolism:碳代谢;Glycosaminoglycan degradation:糖胺聚糖的降解;Retrograde endocannabinoid signaling:逆行内源性大麻素信号;Antigen processing and presentation:抗原处理和呈递;Fructose and mannose metabolism:果糖和甘露糖代谢;Glyoxylate and dicarboxylate metabolism:乙醛酸盐和二羧酸盐代谢;Complement and coagulation cascades:补体和凝血级联;Oxidative phosphorylation:氧化磷酸化;Protein processing in endoplasmic reticulum:内质网中的蛋白质加工。

Fig.8 KEGG pathway enrichment analysis of DEGs of spleen

其中与免疫相关的主要信号通路有补体和凝血级联、抗原处理和呈递等信号通路。表7为SS组和CON组脾脏组织主要免疫信号通路对应的DEGs。补体和凝血级联信号通路中DEGs数有8个,其中上调的基因主要有尾鞘蛋白(FI)、血清补体C1q受体(C1qrs)、补体1抑制因子[C1INHSERPING1)]和补体C3A受体1(C3AR1),其中下调的基因主要有血管性血友病因子(VWF)、膜辅蛋白(MCP)、痘病毒磷脂酶蛋白(F13)和纤维蛋白原(FGB);抗原加工和呈递信号通路中DEGs数有9个,其中上调的基因主要有热休克蛋白70(HSP70)、T细胞表面糖蛋白CD8α链(CD8A)、T细胞表面糖蛋白CD8β链(CD8B)、102272312、102278697和102273821,其中下调的基因主要有肌球蛋白重链Ⅰ类分子(MHCⅠ)、novel.1911和102273886。
表7 SS组和CON组脾脏主要免疫信号通路对应的差异表达基因

Table 7 DEGs corresponding to major immune signal pathways of spleen in SS and CON groups

KEGG通路名称
KEGG pathway name
差异表达基因数
Number of DEGs/个
主要差异表达基因名称
Main DEGs name
调节
Regulate
补体和凝血级联
Complement and coagulation cascades
8 FIC1qrsC1INHSERPING1)、C3AR1
VWFMCPF13、FGB
上调
下调
抗原加工和呈递
Antigen processing and presentation
9 HSP70、CD8ACD8B、102272312、102278697、102273821
MHCⅠ、novel.1911、102273886
上调
下调

FI:尾鞘蛋白 caudal sheath protein;C1qrs:血清补体C1q受体 serum complement C1q receptor;C1INHSERPING1):补体1抑制因子 complement 1 inhibitor;C3AR1:补体C3A受体1 complement C3A receptor 1;VWF:血管性血友病因子 von Willebrand factor;MCP:膜辅蛋白 membrane coprotein;F13:痘病毒磷脂酶蛋白 poxvirus phospholipase protein;FGB:纤维蛋白原 fibrinogen;HSP70:热休克蛋白70 heat shock protein 70;CD8A:T细胞表面糖蛋白CD8α链 CD8α chain of T cell surface glycoprotein;CD8B:T细胞表面糖蛋白CD8β链 CD8 beta chain of T cell surface glycoprotein;MHCⅠ:肌球蛋白重链Ⅰ类分子 myosin heavy chain class Ⅰ molecule。

2.6 DEGs的实时荧光定量PCR验证

2.6.1 SS和CON组胸腺DEGs的实时荧光定量PCR验证
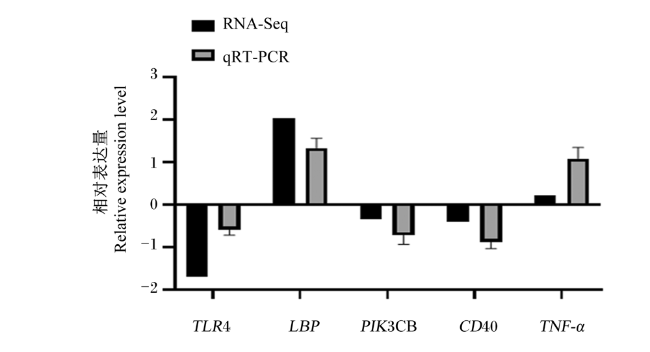
为了验证DEGs数据,根据P-adjust≤0.05和|log2 FC|≥1,胸腺挑选5个DEGs,进行qRT-PCR验证。qRT-PCR检测到的TLR4、LBP、磷脂酰肌醇-4,5-二磷酸3激酶催化亚基β(PIK3CB)、CD40和TNF-α基因相对表达水平与RNA-Seq数据具有较强的一致性(图9),表明RNA-Seq数据准确有效,可用于后续分析。
图9 胸腺DEGs实时荧光定量PCR验证

TLR4:Toll样受体4 Toll-like receptor 4;LBP:脂多糖结合蛋白 LPS-binding protein;PIK3CB:磷脂酰肌醇-4,5-二磷酸3激酶催化亚基β phosphatidylinositol-4, 5-bisphosphate 3-kinase catalytic subunit β;CD40:肿瘤坏死因子受体超家族成员5 tumor necrosis factor receptor superfamily member 5;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α。

Fig.9 qRT-PCR validation for DEGs of thymus

2.6.2 SS组和CON组脾脏DEGs的实时荧光定量PCR验证

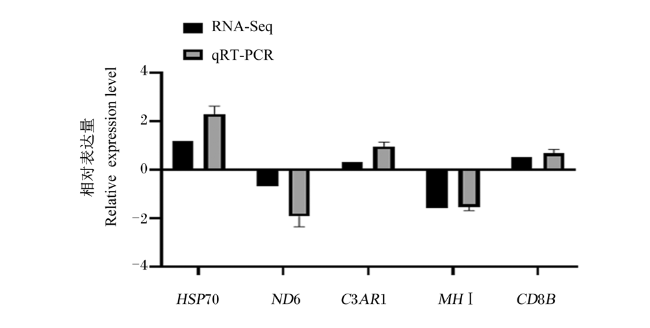
为了验证DEGs数据,根据P-adjust≤0.05和|log2 FC|≥1,脾脏组织挑选5个DEGs,进行qRT-PCR验证。qRT-PCR检测到的HSP70、NADH脱氢酶亚单位6(ND6)、C3AR1、母体单倍体Ⅰ类分子(MHⅠ)和CD8B基因相对表达水平与RNA-Seq数据具有较强的一致性(图10),表明这些RNA-Seq数据准确有效,可用于后续分析。
图10 脾脏DEGs实时荧光定量PCR验证

HSP70:热休克蛋白70 heat shock protein 70;ND6:NADH脱氢酶亚单位6 NADH dehydrogenase subunit 6;C3AR1:补体C3A受体1 complement C3A receptor 1;MHⅠ:母体单倍体Ⅰ类分子 parent haploid class Ⅰ molecule;CD8B:T细胞表面糖蛋白CD8β链 CD8 beta chain of T cell surface glycoprotein。

Fig.10 qRT-PCR validation for DEGs of spleen

3 讨论

3.1 补饲开食料对早期断奶牦牛犊牛生长性能的影响

幼龄时期是动物机体生长发育的重要阶段,直接影响成年牛的生长性能表现。体重是反映牦牛犊牛生长性能的重要指标之一。牦牛传统放牧生产模式下,犊牛出生后采用随母哺乳加放牧的方式进行培育,此时放牧草地牧草随季节变化,其数量和营养品质大幅降低,导致带犊母牦牛泌乳量逐渐下降。母乳和天然牧草中的能量、蛋白质、矿物质、维生素等营养物质不能满足牦牛犊牛生长发育所需,会造成犊牛生长发育缓慢,同时不利于消化道更好发育[13]。哺乳期犊牛的胃肠道发育未完善,对粗纤维饲粮利用能力较差,适当补充开食料可加快犊牛适应植物饲料,提高犊牛采食量从而促进其生长发育,充分发挥其快速生长的潜力[5,14],与本试验中补饲开食料提高牦牛犊牛的生长性能的研究结果一致。开食料是一种饲用品质优良的固体饲料,适口性好,适时补饲开食料能提高幼龄反刍家畜瘤胃细菌活性,促进粗纤维的降解,加快瘤胃排空速率[15],提高幼龄动物的采食量。已有研究表明,补饲开食料是牦牛犊牛从液体向固体饲料采食的一个重要过渡,较早采食开食料可以显著提高犊牛的采食量和生长性能[16],与本试验补饲开食料提高牦牛犊牛的生长性能和平均日采食量结果相一致。

3.2 补饲开食料调节早期断奶牦牛犊牛胸腺发育的转录组学分析

胸腺作为中枢免疫器官,是T细胞分化和成熟的场所,对机体抵抗细菌、病毒繁殖与新陈代谢有着重要作用[17]。犊牛时期新陈代谢旺盛,对营养需求高。已有研究证明,在生命早期营养不良时可观察到胸腺萎缩和胸腺细胞凋亡增加[18-19]。开食料营养价值高,可以刺激犊牛瘤胃及消化道的发育,补充多种犊牛所需的营养物质。因此,在犊牛时期补饲开食料提高犊牛营养水平对维持胸腺的正常发育具有重要意义。本试验应用RNA-Seq转录组方法研究牦牛犊牛补饲开食料胸腺DEGs表达变化的规律。在牦牛犊牛生长发育过程中,补饲开食料和未补开食料胸腺组织基因表达存在显著差异。根据生物信息学分析的结果,胸腺变化的相关DEGs主要参与信号转导过程(PI3K-Akt信号通路、糖尿病并发症中的AGE-RAGE信号通路),信号分子和相互作用过程(ECM-受体相互作用、焦点黏附),细胞群落作用过程(黏着斑、紧密连接、调节干细胞多能性的信号通路),免疫系统(NF-κB信号通路、肿瘤坏死因子信号通路)等通路。
整合素和ECM相互作用,在协调细胞黏附、迁移和增殖等多种生物过程中发挥着重要作用,细胞迁移影响使ECM诱导的胸腺T细胞分化[20]。胸腺发生炎症时,ECM成分积累,损害胸腺微环境,进而影响胸腺免疫功能[21],本研究中,ECM-受体相互作用信号通路下调,说明补饲开食料提高蛋白质营养水平不会损害胸腺的微环境、影响胸腺免疫功能。PI3K-Akt信号通路参与细胞功能的调节,如细胞增殖、分化、凋亡等,可被多种理化因子激活,发挥其在免疫、肿瘤、代谢和心血管疾病等方面的调控作用[22]TLRs是促炎细胞因子释放的主要通路之一,可活化下游PI3K/Akt/哺乳动物雷帕霉素靶蛋白(mTOR)信号通路[23],参与机体炎症反应,TLR2主要识别细胞宿主外脂蛋白和糖脂,TLR4主要识别病原菌细胞壁的脂多糖[24]。刘楠等[25]在研究中发现,机体抑制PI3K-Akt信号通路,降低促炎因子生成,提高机体免疫力;王卓[26]在研究中发现,提高机体营养水平,上调TLRs抑制剂可以保护肠道免受TLRs介导产生的免疫损伤。而开食料富含多种犊牛所需营养素,营养全面,本研究中牦牛犊牛补饲开食料提高机体营养水平,胸腺组织中TLR2、TLR4基因下调,抑制PI3K/Akt/mTOR信号通路,从而抑制机体炎症反应与上述研究结果一致。补饲开食料牦牛犊牛胸腺中编码细胞因子(IL-2、IL-4、IL-6等)的基因显著上调,但编码其受体(IL-2RIL-4RIL-6R)的基因显著下调,最后可能导致免疫因子在蛋白水平上差异并不显著,说明补饲开食料提高牦牛犊牛蛋白质水平的摄入不会导致胸腺中细胞因子含量的变化。ⅠB类PI3K(PI3Kγ)是一种转导炎症的脂质激酶,是中枢促炎传导器,通过免疫系统影响胰岛素转导[27],抵抗胰岛素,易造成肥胖疾病影响机体健康[28]。GPCR的Gβγ复合物激活PI3Kγ,PI3Kγ和ⅠA类PI3K都通过激活PIP3,激活下游信号分子AKT参与PI3k-Akt信号通路[29],促进机体的炎症反应。本试验中,GPCRGβγ基因均上调,ⅠA类PI3K基因下调,PI3PIP3基因变化不显著,说明牦牛犊牛补饲开食料提高牦牛犊牛营养水平的摄入虽然上调了GPCRGβγ基因的表达,但未促进机体炎症反应。薛静等[30]研究发现,PI3过表达会促进炎症反应,说明该基因下调会抑制PI3K-Akt信号通路从而抑制机体炎症反应。
NF-κB信号通路是免疫器官及免疫细胞正常发育和生成、识别炎性因子和抗原、启动免疫反应的重要信号通路[31]。研究表明,相关启动因子与NF-κB因子结合,启动炎性细胞因子,如TNF-α等的基因转录,从而激活机体免疫系统,促进免疫细胞发育,调节机体的免疫功能和炎症,TNF-α基因上调,激活IκB激酶(IKK),降解磷酸化核因子κB抑制蛋白(IκB),活化NF-κB信号通路,促进炎症反应和抗凋亡基因的表达[32]。有研究表明,降低饲粮蛋白质水平显著减少NF-κB信号通路的mRNA相对表达量[33]。补饲开食料可以增加蛋白质的摄入量,有助于机体蛋白质的合成。本研究中,牦牛犊牛补饲开食料提高蛋白质营养水平,胸腺组织中TNF-α基因上调,激活IKK复合物基因表达,最终上调NF-κB信号通路,促进炎症反应和抗胸腺细胞的凋亡与上述研究结果一致。LBP是促进LPS与效应细胞结合的关键载体蛋白,具有抗炎与促炎双重作用[34]。研究表明,激活TLR4/髓样分化因子88(MyD88)/NF-κB信号通路,可启动天然免疫和炎性反应有关基因的转录[35]。本研究中,补饲开食料提高牦牛犊牛营养水平的摄入,胸腺LBP基因上调,与CD14受体结合,激活TLR4基因的表达,发挥炎症正反馈调节作用促进炎症反应与上述研究结果一致。CD40配体、LT-βR、BAFF-R特异性激活,IKKα磷酸化,进而调节下游基因的转录,激活NF-κB信号通路[36]。在本试验中,CD40、LT-βRTRAF3基因显著下调,激活下游基因ELCICAM的表达,上调NF-κB信号通路,与上述研究结果一致,说明补饲开食料提高牦牛犊牛营养水平的摄入会促进机体炎症反应,胸腺需要抵抗炎症因子的侵袭维持健康,进而提高胸腺的部分免疫机能。

3.3 补饲开食料调节早期断奶牦牛犊牛脾脏发育的转录组学分析

脾脏是机体免疫应答的重要部位,同时还兼具滤血、造血、储血等功能[37]。研究表明,当蛋白质缺乏时,脾脏的质量会下降,甚至出现萎缩,出现免疫抑制[38];饲料能量缺乏时,会减少脾脏分泌的免疫球蛋白和免疫细胞的数量[39]。因此,补饲开食料提高蛋白质和能量的摄入对维持脾脏的正常发育具有重要意义。凝血系统作为机体免疫应答的重要组成部分[40],当机体营养不良时,凝血系统会发生病理性改变[41],补饲开食料提高机体营养水平可减少凝血系统的病理性改变,发挥其免疫功能;当病毒、细菌等病原体侵入机体,同时激活凝血系统引起血液凝固,进一步阻止病原体入侵机体。研究表明,补体和凝血级联系统通过抗体依赖和非抗体依赖等途径激活酶联反应,是机体的第1道防线和先天性免疫的重要组成部分[42]。当细胞损伤或激活时,会促进VWF的表达,VWF是内皮损伤的一个重要标志且有增加血栓形成的风险[43]VWF会与白细胞结合参与机体的炎症反应。研究表明,当机体营养不良时,VWF等内皮细胞分子表达增多[44]。本研究发现,补饲开食料提高机体营养水平,脾脏组织中VWF基因下调,说明脾脏细胞并未出现损伤,且与白细胞结合的VWF减少,使机体的炎症反应得到抑制。研究表明,病原体感染机体会同时激活凝血系统引起血液凝固,血液凝固会进一步限制病原体入侵机体[45],C4结合蛋白抑制补体2和补体4的合成,调节控制补体C5R1和C3AR1合成,间接作用于机体炎性反应和巨噬细胞聚合等过程[46];补饲开食料牦牛犊牛胸腺组织中FⅠ、C1qrsC1INH等基因均显著上调,导致C3AR1基因上调,激活补体和凝血级联路径抑制炎症反应和限制病原体入侵机体,从而增强脾脏的免疫能力,与上述研究结果一致。补饲开食料提高牦牛犊牛营养水平摄入激活补体和凝血级联路径,增强脾脏对炎症的抵御能力。
当机体受到感染之后,脾脏会产生免疫应答。抗原处理和呈递是脾脏发挥免疫功能的重要信号通路。HSP70可提高MHCⅠ类分子与抗原结合的效率,HSP70在不增加靶细胞表面MHC Ⅰ类分子数量的前提下介导细胞毒性T细胞反应(CTL)的发生[47]。补饲开食料牦牛犊牛脾脏组织中HSP70、CD8基因表达上调、MHCⅠ基因表达下调,说明补饲开食料提高营养水平促进HSP70基因表达,激活MHCⅠ类免疫途径,将抗原信息传递给CD8细胞,转化为致敏的CTL发挥细胞毒性作用,增强脾脏的免疫能力,与Rosenzweig等[48]、Li等[49]研究发现HSP70活化免疫细胞,激活机体细胞免疫的研究结果一致。研究表明,HSP70促进T淋巴细胞的增殖,能够通过MHC Ⅱ类分子呈递过程增强机体的特异性CD4+ T细胞反应,使CD4+辅助性T细胞活化、增殖并表达相应的淋巴因子,激活体液免疫[50],补饲开食料牦牛犊牛脾脏组织中HSP70基因显著上调,但并没有激活MHC Ⅱ路径,很好解释了CD4基因并未上调这一现象,可能补饲开食料并未提高牦牛犊牛脾脏的体液免疫,只激活了细胞免疫,进而促进了脾脏的部分免疫机能。

4 结论

补饲开食料能增加早期断奶牦牛犊牛的营养摄入水平,提高其生长性能;补饲开食料可能主要通过下调PI3K-Akt信号通路和上调NF-κB信号通路来启动免疫反应,增强胸腺的部分免疫机能;补饲开食料可能通过上调抗原处理和呈递、补体和凝血级联等信号通路来增强脾脏的细胞免疫,加强机体对炎症的抵御能力。
[1]
马艳, 向信, 樊嘉凯, 等. 海拔高度对青藏高原放牧牦牛肠道菌群多样性的影响[J]. 微生物学通报, 2022, 49(2):620-634.

MA Y, XIANG X, FAN J K, et al. Effect of altitude on the diversity of gut microbiota of yaks grazing on the Qinghai-Tibet plateau[J]. Microbiology China, 2022, 49(2):620-634. (in Chinese)

[2]
夏洪泽, 黄文植, 张琳琳, 等. 不同分级指数燕麦干草-苜蓿干草组合对牦牛瘤胃体外发酵的影响[J]. 中国农业科技导报, 2021, 23(7):191-201.

XIA H Z, HUANG W Z, ZHANG L L, et al. Influences of oat hay and alfalfa hay combination with different grading indexes on rumen fermentation of yak in vitro[J]. Journal of Agricultural Science and Technology, 2021, 23(7):191-201. (in Chinese)

[3]
文勇立, 赵佳琦. 牦牛的泌乳量测定及其乳特性[J]. 中国乳业, 2019(11):12-18.

WEN Y L, ZHAO J Q. Measurement of lactation and its milk characteristics in yaks[J]. China Dairy, 2019(11):12-18. (in Chinese)

[4]
黄谦, 王春贵. 浅谈冷季牦牛补饲的必要性[J]. 畜禽业, 2019, 30(6):29.

HUANG Q, WANG C G. The necessity of supplementary feeding for yaks in the cold season[J]. Livestock and Poultry Industry, 2019, 30(6):29. (in Chinese)

[5]
郭文杰, 刘书杰, 冯宇哲, 等. 哺乳期补饲开食料对牦牛犊牛生长性能、腹泻频率和发病频率的影响[J]. 动物营养学报, 2022, 34(1):422-431.

GUO W J, LIU S J, FENG Y Z, et al. Effects of starter feed on growth performance,diarrhea frequency and incidence frequency of yak calves during lactation[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):422-431. (in Chinese)

[6]
LONG R J, DING L M, SHANG Z H, et al. The yak grazing system on the Qinghai-Tibetan plateau and its status[J]. The Rangeland Journal, 2008, 30(2):241-246.

DOI

[7]
赵文华. 营养与人体免疫:古老和永恒的研究主题[J]. 中华医学杂志, 2020, 100(46):3657-3658.

ZHAO W H. Nutrition and human immunity:an ancient and eternal research topic[J]. National Medical Journal of China, 2020, 100(46):3657-3658. (in Chinese)

[8]
郭冬生. 营养与免疫关系及其研究进展[J]. 湖南文理学院学报(自然科学版), 2021, 33(3):24-27,48.

GUO D S. Review of the relationship of the nutrition and immune[J]. Journal of Hunan University of Arts and Science (Science and Technology), 2021, 33(3):24-27,48. (in Chinese)

[9]
HORNICK J L, VAN EENAEME C, GÉRARD O, et al. Mechanisms of reduced and compensatory growth[J]. Domestic Animal Endocrinology, 2000, 19(2):121-132.

DOI PMID

[10]
BARREA L, DI SOMMA C, MUSCOGIURI G, et al. Nutrition,inflammation and liver-spleen axis[J]. Critical Reviews in Food Science and Nutrition, 2018, 58(18):3141-3158.

DOI

[11]
李勇, 张成新, 蔡小芳, 等. 牛羊开食料研究进展[J]. 中国饲料, 2020(9):5-11.

LI Y, ZHANG C X, CAI X F, et al. Research progresses on the starter feed for calves and lambs[J]. China Feed, 2020(9):5-11. (in Chinese)

[12]
霍宏, 董旭, 崔一之, 等. 转录组学应用于针灸作用机制研究的探讨[J]. 针灸临床杂志, 2022, 38(1):1-7.

HUO H, DONG X, CUI Y Z, et al. Study on application of transcriptomics in mechanism of acupuncture and moxibustion[J]. Journal of Clinical Acupuncture and Moxibustion, 2022, 38(1):1-7. (in Chinese)

[13]
古力米热·穆萨, 王世昌, 张文杰, 等. 多浪羊母羊泌乳量、乳成分变化及早期补饲对羔羊生长的影响[J]. 中国畜牧杂志, 2021, 57(12):191-195.

MUSA G L M R, WANG S C, ZHANG W J, et al. Effect of lactation, milk composition changes and early supplementation on lamb growth in Dorang ewes[J]. Chinese Journal of Animal Science, 2021, 57(12):191-195. (in Chinese)

[14]
蔡小芳, 张成新, 李勇, 等. 口感化及颗粒化开食料对早期断奶羔羊生长和胃肠道发育的影响[J]. 草业科学, 2021, 38(8):1596-1604.

CAI X F, ZHANG C X, LI Y, et al. Effect of texturized and pelleted starter on growth and gastrointestinal development of early weaning lambs[J]. Pratacultural Science, 2021, 38(8):1596-1604. (in Chinese)

[15]
任春燕, 毕研亮, 郭艳丽, 等. 开食料中性洗涤纤维水平对犊牛生长性能、血清生化指标和抗氧化功能的影响[J]. 中国农业科学, 2020, 53(2):440-450.

REN C Y, BI Y L, GUO Y L, et al. Effects of NDF level of starter on growth performance, serum biochemical parameters and antioxidant indices in calves[J]. Scientia Agricultura Sinica, 2020, 53(2):440-450. (in Chinese)

[16]
段鹏伟, 刘婷, 李彦珍, 等. 不同NDF来源开食料对湖羊羔羊生产性能和胃肠道发育的影响[J]. 草业科学, 2020, 37(8):1608-1619.

DUAN P W, LIU T, LI Y Z, et al. Effects of different starters with different neutral detergent fiber sources on growth performance and gastrointestinal tract development of Hu lambs[J]. Pratacultural Science, 2020, 37(8):1608-1619. (in Chinese)

[17]
CODER B, SU D M. Thymic involution beyond T-cell insufficiency[J]. Oncotarget, 2015, 6(26):21777-21778.

PMID

[18]
闫岩. 营养因子对畜禽免疫系统的调节作用[J]. 中国畜禽种业, 2020, 16(4):58.

YAN Y. Regulation of livestock immune system by nutritional factors[J]. The Chinese Livestock and Poultry Breeding, 2020, 16(4):58. (in Chinese)

[19]
POZZESI N, FIERABRACCI A, THUY T T, et al. Pharmacological modulation of caspase-8 in thymus-related medical conditions[J]. The Journal of Pharmacology and Experimental Therapeutics, 2014, 351(1):18-24.

DOI

[20]
VENDITTI M, MINUCCI S. Prothymosin alpha expression in the vertebrate testis:a comparative review[J]. Zygote, 2017, 25(6):760-770.

DOI

[21]
SAN J S, DU Y T, WU G F, et al. Transcriptome analysis identifies signaling pathways related to meat quality in broiler chickens-the extracellular matrix (ECM) receptor interaction signaling pathway[J]. Poultry Science, 2021, 100(6):101135.

DOI

[22]
CANTLEY L C. The phosphoinositide 3-kinase pathway[J]. Science, 2002, 296(5573):1655-1657.

DOI PMID

[23]
战晶玉, 袁星星, 王炳予, 等. 连草泻痢胶囊对溃疡性结肠炎小鼠模型肠黏膜炎症因子及TLR4/PI3K/Akt/mTOR信号通路的影响[J]. 海南医学院学报, 2021, 27(24):1872-1877.

ZHAN J Y, YUAN X X, WANG B Y, et al. Effects of Liancao-Xieli capsule on intestinal mucosal inflammatory factors and TLR4/PI3K/Akt/mTOR signaling pathway in mice with ulcerative colitis[J]. Journal of Hainan Medical University, 2021, 27(24):1872-1877. (in Chinese)

[24]
WU S Q, LIU X M, CHEN L, et al. Polymorphisms of TLR2,TLR4 and TOLLIP and tuberculosis in two independent studies[J]. Bioscience Reports, 2020, 40(8):BSR20193141.

[25]
刘楠, 李纳, 朱琳, 等. 和厚朴酚通过PI3K/Akt信号通路对哮喘小鼠的作用及其对TLR2、TLR4表达的影响[J]. 中草药, 2019, 50(6):1407-1412.

LIU N, LI N, ZHU L, et al. Effect of honokiol on PI3K/Akt signaling pathway in asthmatic mice and its effect on TLR2 and TLR4 expression[J]. Chinese Traditional and Herbal Drugs, 2019, 50(6):1407-1412. (in Chinese)

[26]
王卓. 鼠李糖乳杆菌调节肠道稳态抵抗肠道致病菌感染的作用研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2020.

WANG Z. Study on the function of Lactobacillus rhamnosus against enteropathogenic bacteria infection through regulating intestinal homeostasis[D]. Master’s Thesis. Harbin: Northeast Agricultural University, 2020. (in Chinese)

[27]
BECATTINI B, MARONE R, ZANI F, et al. PI3Kγ within a nonhematopoietic cell type negatively regulates diet-induced thermogenesis and promotes obesity and insulin resistance[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011, 108(42):E854-E863.

[28]
KANEDA M M, MESSER K S, RALAINIRINA N, et al. PI3Kγ is a molecular switch that controls immune suppression[J]. Nature, 2016, 539(7629):437-442.

DOI

[29]
GUO J M, OTIS J M, SUCIU S K, et al. Primary cilia signaling promotes axonal tract development and is disrupted in Joubert syndrome-related disorders models[J]. Developmental Cell, 2019, 51(6):759-774.e5.

DOI PMID

[30]
薛静, 周军, 魏海梁, 等. MicroRNA作为P13K/AKT/mTOR信号网络的调节剂参与结肠癌转移发病机制的研究进展[J]. 现代消化及介入诊疗, 2021, 26(4):441-445.

XUE J, ZHOU J, WEI H L, et al. Advances in studies on the involvement of microRNA in the pathogenesis of colon cancer metastasis as a modulator of P13K/AKT/mTOR signaling network[J]. Modern Digestion & Intervention, 2021, 26(4):441-445. (in Chinese)

[31]
HAYDEN M S, WEST A P, GHOSH S. NF-κB and the immune response[J]. Oncogene, 2006, 25(51):6758-6780.

DOI

[32]
MAITY A, WOLLMAN R. Information transmission from NF-kβ signaling dynamics to gene expression[J]. PLoS Computational Biology, 2020, 16(8):e1008011.

[33]
安瑞. 低蛋白质饲粮对SD大鼠物质代谢、肠道免疫功能以及微生物区系的影响研究[D]. 硕士学位论文. 重庆: 西南大学, 2020.

AN R. Effects of low-protein diets on the nutrient metabolism,intestinal immune function and microbial flora in SD rats[D]. Master’s Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[34]
厉成敏, 朱乐乐, 李莲, 等. 重组牛脂多糖结合蛋白对脂多糖诱导的奶牛乳腺炎症反应指标的影响[J]. 南京农业大学学报, 2018, 41(4):715-721.

LI C M, ZHU L L, LI L, et al. Effect of recombinant bovine lipopolysaccharide (rbLBP) on indicators of inflammation in lipopolysaccharide induced dairy cows[J]. Journal of Nanjing Agricultural University, 2018, 41(4):715-721. (in Chinese)

[35]
张文霞, 吴惠妃, 杨静, 等. 鳄嘴花对代谢相关脂肪性肝病小鼠TLR4/MyD88/NF-κB信号通路的影响[J]. 中药新药与临床药理, 2022, 33(5):593-598.

ZHANG W X, WU H F, YANG J, et al. Effects of Clinacanthus nutans on TLR4/MyD88/NF-κB signaling pathway in mice with metabolic associated fatty liver disease[J]. Traditional Chinese Drug Research and Clinical Pharmacology, 2022, 33(5):593-598. (in Chinese)

[36]
吴小雨, 何心怡, 陶志炜, 等. 小鼠脾脏和外周血免疫细胞及部分细胞因子的增龄性变化[J]. 山西医科大学学报, 2022, 53(1):69-75.

WU X Y, HE X Y, TAO Z W, et al. Age-related changes of immune cells and some cytokines in spleen and peripheral blood of mice[J]. Journal of Shanxi Medical University, 2022, 53(1):69-75. (in Chinese)

[37]
BRENDOLAN A, ROSADO M M, CARSETTI R, et al. Development and function of the mammalian spleen[J]. BioEssays, 2007, 29(2):166-177.

PMID

[38]
VENTER C, EYERICH S, SARIN T, et al. Nutrition and the immune system:a complicated tango[J]. Nutrients, 2020, 12(3):818.

DOI

[39]
崔原年. 能量限饲及补偿生长对育肥猪生长性能、肌肉品质及IGF-Ⅰ mRNA表达的影响[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2020.

CUI Y N. Effects of energy restriction and compensatory growth on growth performance,muscle quality and IGF-Ⅰ mRNA expression of fattening pigs[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2020. (in Chinese)

[40]
张薇, 阎涛. 血栓形成中的凝血与免疫[J]. 中国卒中杂志, 2020, 15(1):51-56.

ZHANG W, YAN T. Coagulation and immune in thrombosis[J]. Chinese Journal of Stroke, 2020, 15(1):51-56. (in Chinese)

[41]
袁建伟. 介入性血管内栓塞术治疗腹腔镜胃癌根治术后血流动力学不稳定出血的疗效分析[J]. 中国临床医生杂志, 2017, 45(6):81-83.

YUAN J W. Efficacy analysis of interventional intravascular embolization for hemodynamically unstable bleeding after laparoscopic radical surgery for gastric cancer[J]. Chinese Journal for Clinicians, 2017, 45(6):81-83. (in Chinese)

[42]
HUBER-LANG M, SARMA J V, ZETOUNE F S, et al. Generation of C5a in the absence of C3:a new complement activation pathway[J]. Nature Medicine, 2006, 12(6):682-687.

DOI

[43]
AUNG S W, KASIM N H A, SHAMSUDDIN S A A, et al. MicroRNAomic transcriptomic analysis reveal deregulation of clustered cellular functions in human mesenchymal stem cells during in vitro passaging[J]. Stem Cell Reviews and Reports, 2020, 16(1):222-238.

DOI

[44]
陈宏权, 陈云森, 王磊, 等. 缺血性脑小血管病与血生物标志物相关研究[J]. 中华老年心脑血管病杂志, 2020, 22(12):1251-1254.

CHEN H Q, CHEN Y S, WANG L, et al. Relationship between ischemic cerebral small vessel disease and plasma biomarkers[J]. Chinese Journal of Geriatric Heart Brain and Vessel Diseases, 2020, 22(12):1251-1254. (in Chinese)

[45]
凌玉金, 唐玉莲, 倪安妮, 等. 肝细胞癌源血液相关外泌体组分通过补体和凝血级联参与肿瘤组织天然免疫[J]. 医学理论与实践, 2020, 33(18):2957-2960.

LING Y J, TANG Y L, NI A N, et al. Hepatocellular carcinoma-derived blood-related exosomal components involved in natural immune response in the tumor by the pathway of complement and coagulation cascades[J]. The Journal of Medical Theory and Practice, 2020, 33(18):2957-2960. (in Chinese)

[46]
BECKER T, HARTL F U, WIELAND F. CD40,an extracellular receptor for binding and uptake of Hsp70-peptide complexes[J]. Journal of Cell Biology, 2002, 158(7):1277-1285.

[47]
SHARAPOVA T N, ROMANOVA E A, IVANOVA O K, et al. Hsp70 interacts with the TREM-1 receptor expressed on monocytes and thereby stimulates generation of cytotoxic lymphocytes active against MHC-negative tumor cells[J]. International Journal of Molecular Sciences, 2021, 22(13):6889.

DOI

[48]
ROSENZWEIG R, NILLEGODA N B, MAYER M P, et al. The Hsp70 chaperone network[J]. Nature Reviews Molecular Cell Biology, 2019, 20(11):665-680.

DOI PMID

[49]
LI H Y, LI Y, LIU D, et al. Extracellular HSP70/HSP70-PCs promote epithelial-mesenchymal transition of hepatocarcinoma cells[J]. PLoS One, 2013, 8(12):e84759.

DOI

[50]
CHAND K, IYER K, MITRA D. Comparative analysis of differential gene expression of HSP40 and HSP70 family isoforms during heat stress and HIV-1 infection in T-cells[J]. Cell Stress and Chaperones, 2021, 26(2):403-416.

DOI

文章导航

/