综述

细胞因子在猪胚胎附植期的作用及机制

  • 潘旭静 ,
  • 常俊磊 ,
  • 吴德 ,
  • 徐盛玉 , *
展开
  • 四川农业大学动物营养研究所,成都 611130
*徐盛玉,副教授,硕士生导师,E-mail:

潘旭静(1999—),女,河南许昌人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

收稿日期: 2022-09-22

  网络出版日期: 2023-03-16

基金资助

国家自然科学基金青年项目(32102554)

四川省自然科学基金青年项目(2022NSFSC1628)

Roles and Mechanisms of Cytokines in Porcine Embryo Implantation Stage

  • PAN Xujing ,
  • CHANG Junlei ,
  • WU De ,
  • XU Shengyu , *
Expand
  • Animal Nutrition Institute, Sichuan Agricultural University, Chengdu 611130, China
*associate professor, E-mail:

Received date: 2022-09-22

  Online published: 2023-03-16

摘要

猪胚胎的附植是通过广泛的细胞运动和重塑发生。胚胎的成功附植主要取决于胚胎延伸和滋养外胚层与子宫内膜上皮紧密连接的成功,这种紧密连接保证了孕体摄取其存活所必需的子宫腺上皮分泌物质。这些过程需要子宫和胚胎来源的细胞因子完成子宫内膜和滋养外胚层之间的细胞重塑,营造胚胎附植时的促炎微环境,维持附植阶段免疫系统的平衡,协调子宫和胚胎之间的相互作用等。本文主要综述了猪胚胎附植时期,由子宫和胚胎来源的细胞因子包括白细胞介素-1β(IL-1β)、干扰素(IFN)、成纤维细胞生长因子(FGF)、肿瘤坏死因子-α(TNF-α)、转化生长因子-β(TGF-β)发挥的作用及其作用机理,以期为胚胎附植及发育调控相关研究提供参考。

本文引用格式

潘旭静 , 常俊磊 , 吴德 , 徐盛玉 . 细胞因子在猪胚胎附植期的作用及机制[J]. 动物营养学报, 2023 , 35(3) : 1387 -1395 . DOI: 10.12418/CJAN2023.131

Abstract

Implantation of porcine embryos occurs through extensive cell motility and remodeling. The successful implantation of the embryo depends primarily on the success of the embryo in extending and nourishing the tight connection between the trophectoderm and the endometrial epithelium, which ensures that the gestational body takes up the secretory substances of the uterine gland epithelium necessary for its survival. These processes require uterine and embryo-derived cytokines to complete cell remodeling between endometrium and trophoblast ectoderm, create pro-inflammatory microenvironment during embryo attachment, maintain the balance of immune system during implantation, and coordinate the interaction between uterus and embryo. This paper mainly reviewed the roles and mechanisms of uterine and embryonic-derived cytokines including interleukin-1β (IL-1β), interferon (IFN), fibroblast growth factor (FGF), tumor necrosis factor-α (TNF-α) and transforming growth factor-β (TGF-β) during the implantation period of porcine embryos, in order to provide reference for the research of embryo attachment and development regulation.

胚胎植入子宫内膜是一个复杂的过程,也是妊娠成功与否最严格的调控过程之一,其中相关基因、蛋白质和激素在调节子宫和胚胎协调发育过程中发挥了重要作用。猪胚胎附植过程中,许多调控因子在特定的时间释放,在卵巢、胚胎和子宫之间进行内分泌和旁分泌通讯,以同步胚胎和子宫内膜的分化程序[1]。在此过程中,子宫内膜和滋养外胚层之间的界面要发生细胞重塑,此界面发生的细胞重塑不仅受到母体子宫内膜组织分泌的细胞因子如肿瘤坏死因子-α(TNF-α)的影响,还受到胚胎组织分泌的细胞因子如白细胞介素-1β(IL-1β)和干扰素(IFN)的影响[2]。胚胎到达宫腔后正确地定位到子宫上皮,并开始黏连过程。这些活动需要由子宫内膜和胚胎共同分泌的细胞因子如转化生长因子-β(TGF-β)和成纤维细胞生长因子(FGF,包括FGF4和FGF7)等发挥作用[3]。本文综述了调控胚胎着床的细胞因子和与其相关的作用机制,重点介绍TNF-α、IL-1β、IFN、TGF-β和FGF的作用。

1 受精卵发育和胚胎附植

母猪发情持续24~72 h(1~3 d),排卵发生在情期启动后约44 h(约1.8 d)。受精后的胚胎在进入子宫前是位于输卵管的壶腹-峡接合部,胚胎在第4或第8细胞期进入子宫,开始猪胚泡着床阶段。妊娠第5天发育成囊胚,约第7天时在蛋白酶的作用下从透明带中孵出,这是滋养层细胞第1次与母体子宫环境直接接触,之后透明带脱落,约在第10天形成扩大的囊胚,呈小球状,第10.5天呈大球状,第11天呈棒状,第12天呈丝状,以达到滋养外胚层和子宫腔上皮可接触面积最大化[4]
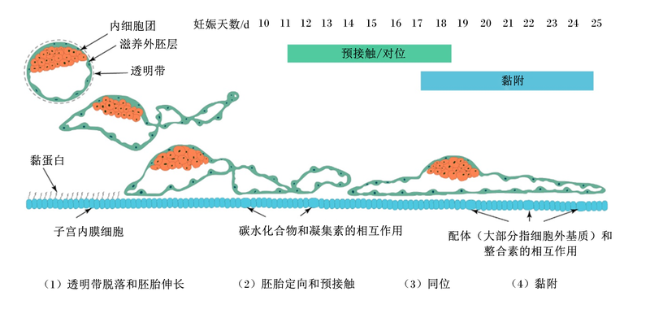
猪胚胎在从管状向丝状过渡的过程中,主要是滋养外胚层和内胚层的增殖、形态重塑和迁移。Geisert等[5]提出猪特有的快速滋养层伸长可以通过胎盘产生IL-1β2来触发,通过子宫角的滋养层伸长提供了允许受孕-子宫内膜相互作用的机制,这对于猪的着床、胎盘和维持妊娠至关重要。而猪胚胎附着的方式被描述为“附植的黏附级联(adhesion cascade for implantation)”。在这种黏附过程中,首先是胚胎滋养外胚层外透明带的脱落,随后是滋养外胚层的伸长,然后对位阶段中将胚胎定位于子宫层,随后滋养外胚层的顶面与子宫层的顶面黏连,从而两者之间形成交错的微绒毛,由这种黏连逐渐过渡到支持胎儿-胎盘在整个妊娠期间发育的上皮绒毛膜胎盘形成。猪的胚胎附植是非入侵式的,胚胎只是黏附在子宫内膜上,一直持续到分娩[6](图1)。
图1 猪胚胎附植的黏附级联过程(参考Johnson等[6])

猪胚胎附植的黏附级联过程主要包括:1)胚胎滋养外胚层延长和透明带脱落;2)子宫腔上皮顶端表面黏蛋白的下调,以潜在的、但尚未鉴定的低亲和力的碳水化合物-凝集素结合分子,来介导胚胎接触前的滋养外胚层向子宫腔上皮的定向;3)低亲和力接触被更稳定和广泛的整合素与母体腔上皮细胞外基质之间的黏附相互作用所取代,来介导滋养外胚层与腔上皮的贴近;4)子宫绒毛细胞顶面表达的整合素受体与精氨酸-甘氨酸-天冬氨酸(RGD)和非RGD氨基酸序列的其细胞外基质分子结合,并与滋养外胚层细胞顶面表达的另一组潜在的整合素受体连接,来介导滋养外胚层黏连。

Fig.1 Cascade adhesion process of porcine embryo implantation (refer to Johnson, et al[6])

The adhesion cascade for pig embryo implantation mainly includes: 1) elongation of embryotrophic ectoderm and shedding of zona pellucida; 2) downregulation of mucin on the apical surface of the uterine lumen to mediate the orientation of the pre-contact trophoblastic ectoderm towards the uterine lumen with potential, but not yet identified, low-affinity carbohydrate-lectin binding molecules; 3) the low affinity contact was replaced by a more stable and extensive adhesion interaction between integrin and the extracellular matrix of the maternal luminal epithelium to mediate the proximity of the trophotrophic ectoderm to the luminal epithelium; 4) the integrin receptor expressed on the apical surface of uterine villus cells binds to the extracellular matrix molecules of arginine-glycine-aspartic acid (RGD) and non-RGD amino acid sequences, and connects to another set of potential integrin receptors expressed on the apical surface of trophoblastic ectodermal cells to mediate trophoblastic ectodermal adhesion.

2 胚胎来源的细胞因子

2.1 IL-1β

IL-1β是一种具有高活性的局部和全身炎症的细胞因子,参与多种免疫反应,单核细胞、巨噬细胞和树突状细胞等在感染过程中分泌IL-1β。IL-1β是一种诱导型多肽,在宿主防御和维持体内平衡中具有多种作用,被认为是感染性、炎症性和自身免疫性疾病的介质[7]
在猪胚胎伸长和着床时,囊胚会释放大量的IL-1β,IL-1β可以启动胚胎和子宫内膜的通信交流,加速滋养层侵袭,使子宫上皮黏附分子、血管通透性和子宫内膜白细胞活性增加,以此来促进胚胎发育[8]。猪滋养外胚层中有2个IL-1β的转录本表达,即猪胚胎可分泌2种IL-1β,即IL-1β1和IL-1β2,2个基因位于第3染色体上非常接近的位置[9]。且猪胚胎的快速伸长涉及IL-1β2的独特表达,IL-1β2在成体组织中没有检测到,但在囊胚中可检测到其转录子,如果猪胚胎的IL-1β2基因被破坏,则在附植时胚胎不能在子宫腔内伸长[10]
研究表明,IL-1β2在妊娠母猪子宫内膜的表达没有变化,随着胚胎伸长的完成,胚胎IL-1β2的mRNA和蛋白丰度在胚胎管状向丝状转变过程中增加,在快速伸长时期高度表达,由于IL-1β2的瞬时表达,其受体在子宫和胚胎中的表达也增加,在第15天时的表达量比第12天的丝状胚胎低2 000多倍,随着妊娠的延长,IL-1β2的表达量迅速下降,子宫腔中IL-1β2蛋白的含量也缓慢下降[11]。以上结果表明来自胚胎的IL-1β可能与胚胎或子宫组织上的IL-1β2受体结合,以自分泌或旁分泌的方式改变子宫和胚胎之间的相互作用[12-13]
在胚胎-母体界面,猪胚胎产生IL-1β2在时间上与子宫内膜内白细胞介素-1受体1(IL-1R1)和辅助蛋白的表达增加以及邻近胚胎的子宫内膜核因子-κB(NF-κB)的激活有关[14]。胚胎分泌的IL-1β2可能通过激活NF-κB提高子宫内膜前列腺素-过氧化物合酶2(PTGS2)活性,使妊娠第12天腔上皮PTGS2转录子增加,从而使子宫内膜PTGS2表达,增强子宫容受性和其在妊娠早期的发育[15]。IL-1β2还可刺激子宫内膜IL1R1表达,IL1R1通过胞外信号调节激酶(ERK)1/2和丝裂原活化蛋白激酶(MAPK)激活一系列信号通路,刺激蛋白质合成和腔上皮的增殖[16]

2.2 IFN

IFN属于螺旋细胞因子家族,是称为细胞因子的糖蛋白大家族的一部分。IFN具有经典的抗病毒、抗增殖和免疫抑制作用,以及独特的生物活性[1]。猪胚胎在围着床期同时表达和分泌Ⅰ型干扰素(IFND)和Ⅱ型干扰素(IFNG),IFND占25%,IFNG占75%,猪胚胎滋养外胚层和子宫腔上皮细胞表达Ⅰ型和Ⅱ型IFN受体(IFNGR),根据IFNGR的定位,IFN可能具有旁分泌和自分泌的作用[17]
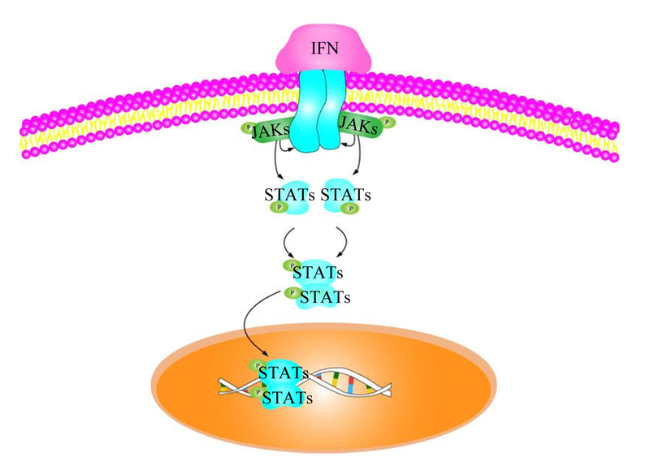
目前已知家畜妊娠期间的一个特征是滋养细胞产生IFND和/或IFNG,它们以时间和空间(细胞特异性)的方式诱导和/或刺激一系列IFN刺激基因(ISGs)的表达[4]。其中妊娠第13~20天,在猪滋养外胚层中可以检测到丰富的IFNG mRNA,从球形到第14天丝状胚胎的转变过程中,IFNG mRNA的含量增加了567倍[18];第15天,IFNG和IFND蛋白共同定位于内质网和高尔基体占据的核膜周围,以及沿着子宫腔上皮滋养外胚层细胞群中的细胞质泡[18]。猪胚胎分泌的IFN中,IFND结合1个由IFN-α受体1(IFNAR1)和IFN-α受体2(IFNAR2)2个亚基组成的受体,它们分别通过Janus激酶(JAKs)和酪氨酸激酶2(TYK2)途径诱导细胞信号转导来触发ISGs的表达[19]。同时,该复合体还可诱导信号转导与转录激活蛋白(STAT)1-STAT2同源二聚体的形成[20],并移位到细胞核形成干扰素刺激基因因子3(ISGF3),然后结合一些ISGs启动子区域的干扰素刺激反应元件(ISRE),来上调ISGs的表达[4,21]。IFNG信号涉及JAKs家族的激活,IFNG利用受体链IFNGR1和IFNGR2,激活JAK1、JAK2和STAT1,JAK1和JAK2分别与IFNG的IFNGR1和IFNGR2亚基组成相关[22]。酪氨酸在IFNG刺激过程中被磷酸化并激活,诱导STAT1发生磷酸化和同源二聚化,然后STAT1作为同源二聚体移位到细胞核,进而诱导IFNG调节基因启动子中含有G-激活序列的基因来启动转录[23](图2)。
图2 JAKs-STATs通路

IFN:干扰素;JAKs:Janus激酶,是一种蛋白酪氨酸激酶,胞内酶的一种,JAKs通过配对的JAKs传递细胞因子信号。STATs:信号转路及转录激活蛋白(signal transducer and activator of transcription),是一种能与DNA结合的蛋白质独特家族。

Fig.2 JAKs-STATs pathways[21]

IFN: interferon; JAKs:Janus kinase, a protein tyrosine kinase, and a type of intracellular enzyme. JAKs transmits cytokine signals through paired JAKs. STATs: signal transducer and activator of transcription, a unique family of proteins that can bind DNA.

Yoo等[24]还分析了IFNG调控的基因,包括兔抗Ⅱ类反式激活因子(CⅡTA)、犬尿氨酸酶(KYNU)和吲哚胺2,3-双加氧酶1(IDO1)这些重要的免疫调节因子在整个妊娠过程中在子宫内膜的表达,发现它们在妊娠第15天表达水平最高,对应于胚胎分泌IFNG的高峰期。而CⅡTA、KYNU和IDO1蛋白在子宫内膜中以细胞类型和妊娠状态特异性的方式表达,所以IFNG在子宫内膜中的过度表达主要与免疫反应有关,且在调节母猪的免疫反应中发挥重要作用[24]
综上可知,在胚胎附植期,IL-1β和IFN在胚胎和子宫之间进行内分泌和旁分泌通讯,从而完成子宫内膜和滋养外胚层之间的细胞重塑过程。这些信号通路的激活是胚胎附着和子宫折叠增加所必需的,也是胎盘持续生长和扩张必不可少的过程。

3 子宫内膜来源的细胞因子

TNF-α是一种内源性热原,可诱导发热、恶病质和炎症反应,抑制肿瘤发生、病毒复制和脓毒症;是一种编码在6号染色体上的Th1型促炎性的多功能细胞因子,广泛存在于卵巢、输卵管、子宫和胎盘中,在胚胎组织中也有表达;也是一种细胞信号蛋白,调节多种细胞功能,包括细胞增殖和凋亡[25]
子宫间质细胞分泌的TNF-α长期以来被证明是胚胎附植时的关键因子,因其本质上是一个高度受控的炎症过程,以启动炎症反应来促进着床和妊娠的建立[26]。已有研究发现TNF-α调节子宫内膜基质细胞炎症因子的表达和分泌,从而赋予滋养层细胞迁移和侵袭能力[27]。同时,TNF-α不仅是一种细胞凋亡的激活剂,还具有抗凋亡信号级联作用以及在细胞增殖中的调节作用,提示TNF-α的基本功能是阻止结构异常的子代出生[28]
早先TNF-α主要被认为是一种引发免疫性妊娠丢失的细胞因子,并作为多种胚胎应激的媒介,可激活2条细胞凋亡途径:1)死亡受体介导的信号通路主要由TNF-α通过与细胞表面的TNF-α受体(TNFR)1(含有细胞质死亡结构域)结合而激活,随后半胱天冬酶(Caspase)8和Caspase3激活,招募接头蛋白和与Fas相关的死亡结构域蛋白;2)TNF-α激活线粒体介导的信号通路,包括通过TNF-α/ TNFR1激活Bid和Bax蛋白、细胞凋亡信号以及影响细胞色素c的释放[28]
免疫系统在保证妊娠正常发育的过程中起着重要作用。TNF-α的受体TNFR1和TNFR2几乎存在于所有参与免疫和炎症反应的细胞中,当Th1、Th2、Th17细胞因子和Treg细胞之间的平衡正常时,妊娠才能成功[29],且宫内液中TNF-α和IL-1β的平均浓度与妊娠呈正相关,在受精卵早期取子宫内膜分泌物,IL-1β和TNF-α的浓度明显升高[30]
综上可知,TNF-α最早被认为是血清中出现的一种能使多种肿瘤发生出血性坏死和引发免疫性妊娠丢失的细胞因子,到近年来其已被视为胚胎附植期的一种关键因子,营造胚胎附植时的促炎微环境,维持附植阶段免疫系统的平衡,通过激活2条细胞凋亡途径来阻止结构异常的子代出生,但过多的TNF-α可能造成免疫性的妊娠丢失。

4 子宫内膜和胚胎均分泌的细胞因子

4.1 TGF-β

TGF-β由成纤维细胞和巨噬细胞分泌,是一类与结构相关的细胞因子,在诱导和促进间充质细胞分化和增殖、分泌细胞外基质相关成分方面发挥重要作用,是启动和终止TGF-β/Smad信号通路下游组织修复的主要细胞因子[31-32],参与免疫耐受、胚胎发生和组织重塑的过程,会受到多种细胞因子、激素、酶和microRNA的潜在调节[32]。一般TGF-β以潜伏的形式分泌,已发现有活性的TGF-β有3种亚型(TGF-β1、TGF-β2和TGF-β3),活化的TGF-β1、TGF-β2和TGF-β3通过细胞表面丝氨酸或苏氨酸激酶受体(Ⅰ型和Ⅱ型)传递信号[33]
许多物种的母体-胚胎界面都有TGF-β表达,并与妊娠期间母体-胚胎之间的互作有关,妊娠第10~14天滋养外胚层和内胚层TGF-β的mRNA表达量增加了2~4倍,胚胎及胚外细胞中TGF-β1、TGF-β2、TGF-β3以及TGF-β的Ⅰ型和Ⅱ型受体(TGF-βRⅠ和TGF-βRⅡ)都有表达,且在子宫腔上皮和基质中TGF-β1、TGF-β2和TGF-β3转录子及TGF-β蛋白、TGF-βRⅠ和TGF-βRⅡ的表达也逐渐增加[32,34-35]。TGF-βRⅠ存在于子宫内膜细胞,在妊娠第14天子宫内膜中TGF-β1 mRNA和蛋白含量增加,且在妊娠第10~24天的子宫腔上皮和腺上皮细胞的细胞核中均可检测到磷酸化的Smad2/3蛋白,由此可知,机体可通过调节子宫内膜TGF-β1的合成,刺激滋养层细胞增殖来支持胚胎存活和附植[36]。功能性接合素可支持胚胎附着,促进TGF-β活化,使其与受体相互作用,支持胚胎附植[37-38];TGF-β还可通过自分泌或旁分泌的作用诱导自身的基因表达。妊娠第10天,滋养外胚层、内胚层和胚胎外胚层中就出现了TGF-β的强烈免疫反应,但TGF-β蛋白的表达在妊娠10~14天似乎没有变化[32]。雌二醇可上调人子宫内膜间质细胞TGF-β mRNA的表达,猜测在植入期所分泌的雌激素可能对猪子宫内膜中的TGF-β也有类似作用[39],而间质细胞中TGF-β的增加,是通过间质与上皮细胞间的互作导致子宫中TGF-β蛋白增加[35]。在小鼠上发现子宫中TGF-βR表达减少会导致TGF-β信号改变,使着床延迟,说明TGF-β信号在附植过程发挥重要作用[40]

4.2 FGF

FGF是一种最初被鉴定为刺激成纤维细胞增殖的蛋白质,由22个生长因子组成,根据系统发育、序列同源性和生化功能分为7个亚组,典型的FGF包括FGF1(FGF1/2)、FGF4(FGF4/5/6)、FGF7(FGF3/7/10/22)、FGF8(FGF8/17/18)和FGF9(FGF9/16/20)亚家族[41]

4.2.1 FGF4

FGF4是一种分泌型配体,主要在卵球形的猪胚胎滋养外胚层细胞中检测到,在胎盘中检测到微弱的细胞质染色[42]。在猪胚胎卵球形转变的过程中,胚盘和滋养外胚层之间存在着旁分泌信号,其中一个信号就是由FGF4所提供[43],且FGF4是第1个被证明在促进滋养层细胞增殖中起关键作用的分子[44]。FGF4对胚胎外胚层中滋养层干细胞生态位的发育至关重要,滋养层干细胞是极性滋养层的衍生物。胚外外胚层中的FGF4信号是由成纤维细胞生长因子受体2(FGFR2)介导,然后FGFR2触发刺激尾型同源盒转录因子2(Cdx2)表达的Ras/ERK反应[45]
胚胎附植期,胚胎和子宫内膜产生的上覆滋养外胚层和中胚层细胞分化之间的串扰会涉及FGF4的产生[42],FGF4与滋养外胚层表达的FGFR2结合,通过MAPK和磷脂酰肌醇-3-激酶(PI3K)/丝氨酸-苏氨酸蛋白激酶(AKT)发挥作用[46]。对小鼠的研究发现,FGF4与滋养外胚层上表达的FGFR2结合,从而触发磷酸化的细胞内反应(p42/44ERK)[47]。体外试验中,FGF4可促进猪滋养细胞的迁移,表明FGF4刺激中胚层分化和扩张并通过旁分泌信号来使胚胎伸长[46]。胚胎中胚层的生长和FGF4的产生可改变覆盖滋养外胚层的微丝和细胞连接复合物[48],并激活下层内胚层的细胞迁移,来重塑和使胚胎从卵形过渡到丝状[49]
尽管附植期FGF4的产生和信号转导与胚胎伸长有时间上的联系,但在体外用FGF4处理猪卵球形胚胎时并不能刺激胚胎的生长[49],但这并不说明FGF4在体内胚胎重塑中没有作用。FGF4无效的小鼠胚胎个体可限制细胞的分化和发育,使其无法存活,在培养基中加入FGF4可使无效的胚胎个体继续发育[43],且在体外培养中,卵圆形胚胎与外源FGF4孵育后,p-MAPK反应与FGF4结合显示出直接关系,表皮细胞分泌的FGF4与胚外外胚层强烈结合;FGF4和MAPK通过滋养外胚层表达FGFR2,可诱导中胚层表达骨形态发生蛋白4(BMP4)[49]。Murohashi等[50]在小鼠上已经发现,FGF4和BMP4在维持早期胚胎的滋养层干细胞和内细胞团(ICM)细胞中提供了旁分泌机制,并且在滋养外胚层从FGF4-FGFR2-FRS2a-ERK-Cdx2到BMP4的途径导致了BMP4的分泌,这对于ICM细胞的正常生长和早期胚胎的正常发育非常重要。

4.2.2 FGF7

附植期间表皮细胞并不是猪胚胎FGF的唯一来源,因FGF7和FGF9是由妊娠母猪的子宫内膜细胞产生的,FGF7能刺激细胞增殖、分化、迁移和血管生成,主要在妊娠早期的腔上皮细胞和妊娠晚期的腺上皮细胞中表达[11]FGF7在猪子宫腔上皮表达,FGFR2在腔上皮、腺上皮和滋养外胚层表达,从而影响胚胎发育和着床期的细胞增殖和分化功能[51]。在发情期和妊娠第9天FGF7 mRNA开始在猪子宫腔上皮表达,妊娠第12天表达最高,在发情期和妊娠第12天的子宫冲洗液中也可检测到FGF7蛋白,随后至第20天表达丰富,所以妊娠围着床期子宫腔中FGF7蛋白丰富[52]。这与FGF7在基质来源的细胞中表达和其受体仅在上皮细胞上表达的说法相反的是,FGF7 mRNA最初在猪子宫腔上皮中表达,随后在腔上皮和腺上皮中表达,其受体FGFR2Ⅲb在猪子宫内膜上皮和胚胎滋养外胚层中都存在[52]。而它能刺激滋养外胚层增殖,但不能刺激子宫内膜上皮细胞进行增殖,这表明FGF7是胚胎伸长的旁分泌介质,同时也是子宫和胚胎之间相互作用的调节器[53]。此外,FGF7还能通过猪滋养外胚层细胞,促进细胞增殖和激活ERK1/2[53]
综上可知,TGF-β通过激活细胞内信号转导,导致不同基因表达,来调控猪妊娠早期的子宫功能,而FGF4产生的旁分泌信号使附植期的胚胎伸长,其基因的缺失会导致囊胚内胚层不分化,从而导致胚胎发育失败而死亡。总之,FGF信号参与胚胎附植、原肠胚的形成等多个过程的调控,其在胚胎发育期间发挥着关键作用。

5 小结与展望

猪胚胎附植过程中,首先随着猪胚胎的伸长开始分泌雌激素,同时分泌大量的IL-1β,在妊娠第12天其表达和分泌急剧上升,在妊娠第15~18天其表达和分泌急剧下降,推测IL-1β的产生可能弥补PTGS2衍生时前列腺素的缺乏。IFNG和IFND在妊娠第14天和第25天达到顶峰,且间质STAT1最初的增加仅限于猪胚胎和子宫之间密切联系的部位,目前已知只有有限数量的IFN反应基因定位于猪的子宫内膜,但其具体作用仍有待确定。而TGF-β在妊娠第10~14天的滋养外胚层和子宫中表达,通过潜伏期相关肽促进纤维连接蛋白的合成和细胞与纤维连接蛋白的黏附。FGF7在妊娠第9天开始在猪子宫中表达,在妊娠第12天时表达最高,在妊娠第20天时大量表达,是胚胎伸长的旁分泌介质,也是调节子宫和胚胎之间相互作用的因子。关于这些细胞因子,目前已了解的都是在妊娠前期表现出强烈变化,与妊娠激素或是整合素之间有相互作用;同时,它们调控着滋养外胚层和子宫上皮以及基质细胞中其他基因的表达,活跃在子宫内膜和滋养外胚层之间的细胞重塑过程中。但对于这些细胞因子之间是否有互作关系目前还未有确切的证明,需要进行进一步的研究。
细胞因子调控猪胚胎附植机理的研究,是改善母猪的繁殖性能的生理基础,对提高母猪产仔数具有重要的理论意义和实践价值。未来可以更加深入地研究在胚胎附植时期这些细胞因子间是否存在相互作用,以及关于这些细胞因子升高或下降时对胚胎附植有怎样的具体作用,同时是否可以通过调控营养水平来调控这些细胞因子在胚胎附植时期的表达水平,以便更好地解决母猪在生产中的繁殖障碍或者生产力不高的问题。
[1]
BAZER F W, SPENCER T E, JOHNSON G A, et al. Comparative aspects of implantation[J]. Reproduction, 2009, 138(2):195-209.

DOI PMID

[2]
GEISERT R D, LUCY M C, WHYTE J J, et al. Cytokines from the pig conceptus:roles in conceptus development in pigs[J]. Journal of Animal Science and Biotechnology, 2014, 5(1):51.

DOI

[3]
IMAKAWA K, CHANG K T, CHRISTENSON R K. Pre-implantation conceptus and maternal uterine communications:molecular events leading to successful implantation[J]. The Journal of Reproduction and Development, 2004, 50(2):155-169.

DOI

[4]
BAZER F W, SPENCER T E, JOHNSON G A. Interferons and uterine receptivity[J]. Seminars in Reproductive Medicine, 2009, 27(1):90-102.

DOI PMID

[5]
GEISERT R D, JOHNSON G A, BURGHARDT R C. Implantation and establishment of pregnancy in the pig[J]. Advances in Anatomy,Embryology,and Cell Biology, 2015, 216:137-163.

[6]
JOHNSON G A, BAZER F W, SEO H. The early stages of implantation and placentation in the pig[J]. Advances in Anatomy,Embryology,and Cell Biology, 2021, 234:61-89.

[7]
MANTOVANI A, DINARELLO C A, MOLGORA M, et al. Interleukin-1 and related cytokines in the regulation of inflammation and immunity[J]. Immunity, 2019, 50(4):778-795.

DOI PMID

[8]
BAZER F W, JOHNSON G A. Pig blastocyst-uterine interactions[J]. Differentiation, 2014, 87(1/2):52-65.

DOI

[9]
MATHEW D J, NEWSOM E M, GUYTON J M, et al. Activation of the transcription factor nuclear factor-kappa B in uterine luminal epithelial cells by interleukin 1 beta 2:a novel interleukin 1 expressed by the elongating pig conceptus[J]. Biology of Reproduction, 2015, 92(4):107.

[10]
GEISERT R D, WHYTE J J, MEYER A E, et al. Rapid conceptus elongation in the pig:an interleukin 1 beta 2 and estrogen-regulated phenomenon[J]. Molecular Reproduction and Development, 2017, 84(9):760-774.

DOI

[11]
ROSS J W, ASHWORTH M D, HURST A G, et al. Analysis and characterization of differential gene expression during rapid trophoblastic elongation in the pig using suppression subtractive hybridization[J]. Reproductive Biology and Endocrinology, 2003, 1:23.

PMID

[12]
WHYTE J J, MEYER A E, SPATE L D, et al. Inactivation of porcine interleukin-1β results in failure of rapid conceptus elongation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(2):307-312.

DOI PMID

[13]
KA H, SEO H, CHOI Y, et al. Endometrial response to conceptus-derived estrogen and interleukin-1β at the time of implantation in pigs[J]. Journal of Animal Science and Biotechnology, 2018, 9(1):44.

DOI

[14]
SEO H, CHOI Y, SHIM J, et al. Regulatory mechanism for expression of IL1B receptors in the uterine endometrium and effects of IL1B on prostaglandin synthetic enzymes during the implantation period in pigs[J]. Biology of Reproduction, 2012, 87(2):31.

DOI PMID

[15]
NAKAMURA H, KIMURA T, OGITA K, et al. Alteration of the timing of implantation by in vivo gene transfer:delay of implantation by suppression of nuclear factor κB activity and partial rescue by leukemia inhibitory factor[J]. Biochemical and Biophysical Research Communications, 2004, 321(4):886-892.

DOI

[16]
JEONG W, KIM J, BAZER F W, et al. Stimulatory effects of interleukin-1 beta on development of porcine uterine epithelial cell are mediated by activation of the ERK1/2 MAPK cell signaling cascade[J]. Molecular and Cellular Endocrinology, 2016, 419:225-234.

DOI PMID

[17]
LEFÈVRE F, GUILLOMOT M, D'ANDRÉA S, et al. Interferon-delta:the first member of a novel type I interferon family[J]. Biochimie, 1998, 80(8/9):779-788.

DOI

[18]
CENCIČ A, GUILLOMOT M, KOREN S, et al. Trophoblastic interferons:do they modulate uterine cellular markers at the time of conceptus attachment in the pig?[J]. Placenta, 2003, 24(8/9):862-869.

DOI

[19]
JANG H, CHOI Y, YOO I, et al. Characterization of interferon α and β receptor IFNAR1 and IFNAR2 expression and regulation in the uterine endometrium during the estrous cycle and pregnancy in pigs[J]. Theriogenology, 2017, 88:166-173.

DOI

[20]
GONZÁLEZ-NAVAJAS J M, LEE J, DAVID M, et al. Immunomodulatory functions of type I interferons[J]. Nature Reviews Immunology, 2012, 12(2):125-135.

DOI

[21]
MATHEW D J, LUCY M C, D GEISERT R. Interleukins,interferons,and establishment of pregnancy in pigs[J]. Reproduction, 2016, 151(6):R111-R122.

DOI

[22]
DARNELL J E Jr, KERR I M, STARK G R. Jak-STAT pathways and transcriptional activation in response to IFNs and other extracellular signaling proteins[J]. Science, 1994, 264(5164):1415-1421.

DOI PMID

[23]
MICALLEF A, GRECH N, FARRUGIA F, et al. The role of interferons in early pregnancy[J]. Gynecological Endocrinology, 2014, 30(1):1-6.

DOI PMID

[24]
YOO I, KIM D, HAN J, et al. Transcriptomic analysis of interferon-γ-regulated genes in endometrial explants and their possible role in regulating maternal endometrial immunity during the implantation period in pigs,a true epitheliochorial placentation species[J]. Theriogenology, 2020, 155:114-124.

DOI

[25]
WAJANT H, PFIZENMAIER K, SCHEURICH P. Tumor necrosis factor signaling[J]. Cell Death and Differentiation, 2003, 10(1):45-65.

DOI PMID

[26]
MATHEW D J, SELLNER E M, GREEN J C, et al. Uterine progesterone receptor expression,conceptus development,and ovarian function in pigs treated with RU 486 during early pregnancy[J]. Biology of Reproduction, 2011, 84(1):130-139.

DOI

[27]
YOU Y, STELZL P, JOSEPH D N, et al. TNF-α regulated endometrial stroma secretome promotes trophoblast invasion[J]. Frontiers in Immunology, 2021, 12:737401.

[28]
TODER V, FEIN A, CARP H, et al. TNF-alpha in pregnancy loss and embryo maldevelopment:a mediator of detrimental stimuli or a protector of the fetoplacental unit?[J]. Journal of Assisted Reproduction and Genetics, 2003, 20(2):73-81.

DOI

[29]
ALIJOTAS-REIG J, ESTEVE-VALVERDE E, FERRER-OLIVERAS R, et al. Tumor necrosis factor-alpha and pregnancy:focus on biologics.An updated and comprehensive review[J]. Clinical Reviews in Allergy & Immunology, 2017, 53(1):40-53.

[30]
SALAMA K M, ALLOUSH M K, AL HUSSINI R M. Are the cytokines TNF alpha and IL-1beta early predictors of embryo implantation?Cross sectional study[J]. Journal of Reproductive Immunology, 2020, 137:102618.

[31]
ABUDUKEYOUMU A, LI M Q, XIE F. Transforming growth factor-β1 in intrauterine adhesion[J]. American Journal of Reproductive Immunology, 2020, 84(2):e13262.

[32]
MASSUTO D A, KNEESE E C, JOHNSON G A, et al. Transforming growth factor beta (TGFB) signaling is activated during porcine implantation:proposed role for latency-associated peptide interactions with integrins at the conceptus-maternal interface[J]. Reproduction, 2010, 139(2):465-478.

DOI

[33]
STOCKIS J, DEDOBBELEER O, LUCAS S. Role of GARP in the activation of latent TGF-β1[J]. Molecular BioSystems, 2017, 13(10):1925-1935.

DOI PMID

[34]
GUPTA A, DEKANEY C M, BAZER F W, et al. Beta transforming growth factors (TGFbeta) at the porcine conceptus-maternal interface.Part Ⅱ:uterine TGFbeta bioactivity and expression of immunoreactive TGFbetas (TGFbeta1,TGFbeta2,and TGFbeta3) and their receptors (type Ⅰ and type Ⅱ)[J]. Biology of Reproduction, 1998, 59(4):911-917.

DOI

[35]
GUPTA A, ING N H, BAZER F W, et al. Beta transforming growth factors (TGFss) at the porcine conceptus-maternal interface.Part Ⅰ:expression of TGFbeta1,TGFbeta2,and TGFbeta3 messenger ribonucleic acids[J]. Biology of Reproduction, 1998, 59(4):905-910.

DOI

[36]
BLITEK A, MORAWSKA-PUCINSKA E, SZYMANSKA M, et al. Effect of conceptus on transforming growth factor (TGF) β1 mRNA expression and protein concentration in the porcine endometrium—in vivo and in vitro studies[J]. The Journal of Reproduction and Development, 2013, 59(6):512-519.

DOI

[37]
JAEGER L A, SPIEGEL A K, ING N H, et al. Functional effects of transforming growth factor beta on adhesive properties of porcine trophectoderm[J]. Endocrinology, 2005, 146(9):3933-3942.

PMID

[38]
MASSUTO D A, HOOPER R N, KNEESE E C, et al. Intrauterine infusion of latency-associated peptide (LAP) during early porcine pregnancy affects conceptus elongation and placental size[J]. Biology of Reproduction, 2010, 82(3):534-542.

DOI PMID

[39]
ARICI A, MACDONALD P C, CASEY M L. Modulation of the levels of interleukin-8 messenger ribonucleic acid and interleukin-8 protein synthesis in human endometrial stromal cells by transforming growth factor-beta 1[J]. The Journal of Clinical Endocrinology and Metabolism, 1996, 81(8):3004-3009.

[40]
PERRY J S, HEAP R B, AMOROSO E C. Steroid hormone production by pig blastocysts[J]. Nature, 1973, 245(5419):45-47.

DOI

[41]
BEENKEN A, MOHAMMADI M. The FGF family:biology,pathophysiology and therapy[J]. Nature Reviews Drug Discovery, 2009, 8(3):235-253.

DOI

[42]
FUJII T, SAKURAI N, OSAKI T, et al. Changes in the expression patterns of the genes involved in the segregation and function of inner cell mass and trophectoderm lineages during porcine preimplantation development[J]. The Journal of Reproduction and Development, 2013, 59(2):151-158.

DOI PMID

[43]
FELDMAN B, POUEYMIROU W, PAPAIOANNOU V E, et al. Requirement of FGF-4 for postimplantation mouse development[J]. Science, 1995, 267(5195):246-249.

PMID

[44]
CHAI N, PATEL Y, JACOBSON K, et al. FGF is an essential regulator of the fifth cell division in preimplantation mouse embryos[J]. Developmental Biology, 1998, 198(1):105-115.

PMID

[45]
LU C W, YABUUCHI A, CHEN L Y, et al. Ras-MAPK signaling promotes trophectoderm formation from embryonic stem cells and mouse embryos[J]. Nature Genetics, 2008, 40(7):921-926.

DOI

[46]
JEONG W, LEE J, BAZER F W, et al. Fibroblast growth factor 4-induced migration of porcine trophectoderm cells is mediated via the AKT cell signaling pathway[J]. Molecular and Cellular Endocrinology, 2016, 419:208-216.

DOI PMID

[47]
CORSON L B, YAMANAKA Y, LAI K M V, et al. Spatial and temporal patterns of ERK signaling during mouse embryogenesis[J]. Development, 2003, 130(19):4527-4537.

DOI PMID

[48]
MATTSON B A, OVERSTROM E W, ALBERTINI D F. Transitions in trophectoderm cellular shape and cytoskeletal organization in the elongating pig blastocyst[J]. Biology of Reproduction, 1990, 42(1):195-205.

PMID

[49]
VALDEZ MAGAÑA G, RODRÍGUEZ A, ZHANG H X, et al. Paracrine effects of embryo-derived FGF4 and BMP4 during pig trophoblast elongation[J]. Developmental Biology, 2014, 387(1):15-27.

DOI PMID

[50]
MUROHASHI M, NAKAMURA T, TANAKA S, et al. An FGF4-FRS2alpha-Cdx2 axis in trophoblast stem cells induces Bmp4 to regulate proper growth of early mouse embryos[J]. Stem Cells, 2010, 28(1):113-121.

DOI PMID

[51]
KA H, AL-RAMADAN S, ERIKSON D W, et al. Regulation of expression of fibroblast growth factor 7 in the pig uterus by progesterone and estradiol[J]. Biology of Reproduction, 2007, 77(1):172-180.

PMID

[52]
KA H, SPENCER T E, JOHNSON G A, et al. Keratinocyte growth factor:expression by endometrial epithelia of the porcine uterus[J]. Biology of Reproduction, 2000, 62(6):1772-1778.

DOI

[53]
KA H, JAEGER L A, JOHNSON G A, et al. Keratinocyte growth factor is up-regulated by estrogen in the porcine uterine endometrium and functions in trophectoderm cell proliferation and differentiation[J]. Endocrinology, 2001, 142(6):2303-2310.

PMID

文章导航

/