综述

槲皮素基于内质网应激信号通路调节动物机体健康和疾病的研究进展

  • 梅华迪 , 1 ,
  • 陈秋雨 1 ,
  • 马现永 1, 2 ,
  • 余苗 , 1, 2, *
展开
  • 1 广东省农业科学院动物科学研究所,农业部华南动物营养与饲料重点实验室,畜禽育种国家重点实验室,广东省畜禽育种与营养研究重点实验室,广东省畜禽肉品质量安全控制与评定工程技术研究中心,广州 510640
  • 2 岭南现代农业科学与技术广东省实验室茂名分中心,茂名 525000
*余 苗,副研究员,硕士生导师,E-mail:

梅华迪(1997—),男,湖南常德人,硕士,从事单胃动物生态健康养殖研究。E-mail:

收稿日期: 2022-08-16

  网络出版日期: 2023-03-16

基金资助

广东省自然科学基金项目(2021A1515012120)

国家自然科学基金项目(31902200)

广东省现代农业产业技术体系饲料创新团队项目(2023KJ115)

广东省农业科学院农业优势产业科学团队建设项目(202118TD)

科技创新战略专项资金(高水平农科院建设)-杰出人才(R2020YJ-JC001)

优秀博士(R2020YJ-YB2002)

茂名实验室科研启动项目(2021TDQD002)

广东省清远市清城区现代农业产业园项目

清远市科技计划项目(2020KJJH020)

广东省农业科学院生猪产业研究院(2022研究院04)

Research Progress of Quercetin in Regulating Animal Health and Diseases Based on Endoplasmic Reticulum Stress Signaling Pathway

  • MEI Huadi , 1 ,
  • CHEN Qiuyu 1 ,
  • MA Xianyong 1, 2 ,
  • YU Miao , 1, 2, *
Expand
  • 1 Guangdong Engineering and Technology Research Center for Quality and Safety Control and Evaluation of Livestock and Poultry Meat, Guangdong Key Laboratory of Livestock and Poultry Breeding and Nutrition, State Key Laboratory of Livestock and Poultry Breeding, South China Key Laboratory of Animal Nutrition and Feed, Ministry of Agriculture, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 Maoming Branch, Guangdong Laboratory for Lingnan Modern Agriculture, Maoming 525000, China
*associate professor, E-mail:

Received date: 2022-08-16

  Online published: 2023-03-16

摘要

内质网是蛋白质和脂质生物合成以及跨膜蛋白折叠的场所。生理和病理情况都可影响内质网的功能,导致内质网应激。长期和严重内质网应激可导致细胞的自噬和/或诱导细胞凋亡。多项研究表明,内质网应激是导致许多疾病的主要因素。因此,对内质网应激通路的调节已成为一个潜在的治疗靶点。槲皮素是属于黄酮类植物衍生的次生代谢物,具有一系列有益作用。近年来的研究发现,槲皮素可通过调控内质网应激信号,降低机体发生癌症、肝脏和胰腺疾病、心血管疾病、肠道疾病的风险,减少器官/组织损伤,进而维持动物机体健康。本文主要综述槲皮素调节动物内质网应激中的作用机制及研究进展,旨在为槲皮素的进一步开发利用和治疗动物内质网应激相关疾病方面提供参考。

本文引用格式

梅华迪 , 陈秋雨 , 马现永 , 余苗 . 槲皮素基于内质网应激信号通路调节动物机体健康和疾病的研究进展[J]. 动物营养学报, 2023 , 35(3) : 1413 -1425 . DOI: 10.12418/CJAN2023.134

Abstract

The endoplasmic reticulum (ER) was the place where proteins and lipids are biosynthesized and where transmembrane proteins are folded. Both pathological and physiological situations may disturb the function of the ER, resulting in endoplasmic reticulum stress (ERS). However, prolonged and severe ERS can lead to autophagy and/or the induction of cell apoptosis. Several studies implicated ERS as a major factor contributing to many diseases. Therefore, the modulation of ERS pathways has become a potential therapeutic target. Quercetin is a plant-derived secondary metabolite, which belongs to the flavonoids class which presents a range of beneficial effects. The finding of research in recent years, quercetin can decrease the body risk of cancer, liver and pancreas disease, cardiovascular disease, intestinal disease, and reduce organ/tissue damage by regulating ERS signaling, and maintain animal health. The present study mainly reviewed the action mechanism and research progress of quercetin regulating the ERS in animals. The review is aimed to provide a reference for the further development and utilization of quercetin, and also provide a new perspective for animals in treatment of ERS related diseases.

内质网(endoplasmic reticulum,ER)是一种细胞器,是细胞内蛋白质合成、折叠、加工、修饰、转运的场所,也是调节钙离子稳态和脂质合成与代谢的重要场所[1]。蛋白质作为生命功能的主要承担者,其在ER中的合成、折叠和修饰是受到严格调控的过程,这一过程可以决定细胞的功能、命运和存活。因而,维持ER的正常生理功能可让细胞内生命活动有条不紊地进行,其对机体健康起关键作用。一些生理和病理因素,如氧化应激、低氧、钙稳态紊乱以及随后的未折叠/错误折叠蛋白质的积累,都可能导致内质网应激(endoplasmic reticulum stress,ERS)[2],进而诱发细胞和机体功能紊乱。在ERS条件下,细胞通过激活未折叠蛋白反应(unfold protein response,UPR)介导肌醇需要激酶1(inositol-requiring kinase 1,IRE1)、蛋白激酶受体样内质网激酶(protein kinase receptor like endoplasmic reticulum kinase,PERK)和激活转录因子6(activating transcription factor 6,ATF6)以及下游级联信号通路,减少核糖体中的mRNA翻译和促进蛋白质折叠、分泌和降解等机制,减少ER中的未折叠蛋白负荷[3]。当ERS轻微时,UPR可以帮助细胞恢复和/或适应,促进细胞存活;相反,如果ERS时间过长或过于严重,UPR将无法恢复蛋白质稳态,从而导致自噬,如果压力得不到缓解,还可能导致细胞凋亡[4]。已有研究显示,ERS可参与机体多种疾病的发生和发展,如心血管疾病[5]、呼吸系统疾病[6]、糖尿病[7]、神经退行性疾病[8]和癌症[9]等,继而影响机体健康。因此,寻求一种有效改善ERS的措施可以成为缓解这些疾病的重要治疗靶点,其对动物机体健康意义重大。
槲皮素作为一种植物类黄酮,是植物来源的次生代谢物,具有抗炎、抗氧化、心脏保护、抗癌等多种生物活性[10-11]。体内外研究表明,槲皮素还可通过调节ERS信号,治疗癌症[12]、肝脏疾病[13]、神经系统疾病[14]、胰腺疾病[15]、心血管疾病[16]和肠道疾病[17]等。因此,本文通过综述槲皮素在调节动物ERS及相关疾病中的应用及其作用机制,以期为槲皮素参与调控动物健康及疾病发生的机制提供试验依据,为改善动物健康和治疗相关疾病方面提供参考。

1 UPR信号通路

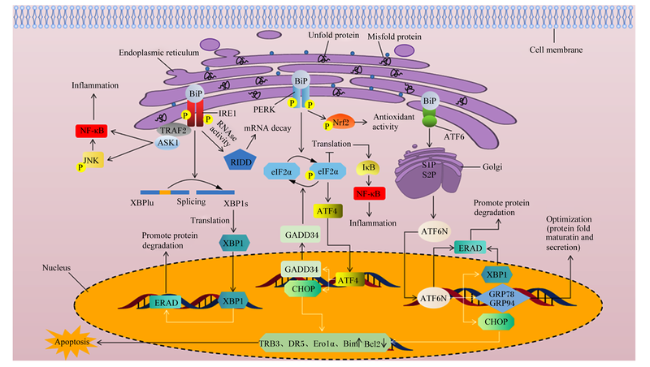
UPR由3种蛋白传感器控制:IRE1、PERK和ATF6,在正常生理情况下,这3种传感器与ER伴侣蛋白-结合免疫球蛋白(binding immunoglobulin protein,BiP)/葡萄糖调节蛋白78(glucose regulated protein 78,GRP78)结合,当错误折叠的蛋白质累积时,结合状态解离,GRP78转而结合未折叠蛋白质以促进蛋白质的正确折叠,但当GRP78达到极限不能彻底清除累积的错误折叠蛋白从而使得细胞损伤不可逆时,解离后的3种传感器激活并作为转录因子启动UPR信号级联反应。

1.1 IRE1信号通路

IRE1α是一种ER跨膜蛋白,具有核糖核酸内切酶活性。在与GRP78解偶联后,IRE1α被反式自磷酸化激活。然后,激活的IRE1α可利用其内切核酸酶活性,选择性地从X-盒结合蛋白1(X-box binding protein 1,XBP1)的mRNA中切割出具有功能活性的XBP1剪接异构体(XBP1s),从而产生更有效的转录因子,其靶向基因参与ER蛋白折叠、细胞内运输、ER生物发生和内质网相关蛋白降解(ER-associated protein degradation,ERAD)以及脂质生物合成,以此减轻蛋白质在ER腔中的积累[18]。同时,激活的IRE1α还可介导mRNA的衰减,以抑制新生蛋白质的合成,进而减轻ERS状况[19]。当ERS加重时,IRE1α还可募集肿瘤坏死因子受体相关因子2(tumor necrosis factor receptor-associated factor 2,TRAF2)和凋亡信号调节激酶1(apoptosis signal-regulating kinase 1,ASK1),从而诱导c-Jun N末端激酶(c-Jun N-terminal kinase,JNK)和核因子-κB(nuclear factor-κB,NF-κB)的激活[20-21]。活化的JNK易位至线粒体膜并刺激抗凋亡蛋白B细胞淋巴瘤2(B cell lymphoma 2,Bcl2)和B细胞淋巴瘤2相互作用细胞死亡介质(B cell lymphoma 2 interacting mediator of cell death,Bim)的磷酸化,随后分别抑制和激活,导致线粒体途径的细胞凋亡[22]

1.2 PERK信号通路

PERK与IRE1同为Ⅰ型跨膜蛋白,通过自磷酸化途径激活。活化的PERK通过促使真核翻译起始因子2α(eukaryotic translation initiation factor 2α,eIF2α)磷酸化,从而减弱mRNA翻译,以减少ER的负荷[23-24]。然而,磷酸化的eIF2α可选择性加强转录激活因子4(ATF4)的翻译,继而调节与蛋白质折叠、氧化应激反应和ERS诱导的细胞凋亡有关基因的表达[25-26]。CCAAT/增强子结合蛋白同源蛋白(CCAAT/enhancer-binding protein homologous protein,CHOP)是ATF4下游的促凋亡靶点,是ERS诱导细胞凋亡的关键介质。首先,CHOP可下调Bcl2或上调Bim、端粒重复序列结合因子3(telomere repeat binding factor 3,TRB3)、死亡受体5(death receptor 5,DR5)等多种促凋亡蛋白表达[27-29]。其次,CHOP可通过增强ER氧化酶1α(ER oxidase 1α,Ero1α)的转录,进而激活肌醇三磷酸受体,这可能导致过多的钙离子(Ca2+)从ER释放到线粒体中,诱发细胞凋亡[30]。此外,ATF4还可通过刺激生长停滞和DNA损伤诱导蛋白34(growth arrest and DNA damage-inducible protein 34,GADD34)的转录,促使eIF2α去磷酸化,从而增强mRNA翻译[31]。同时,PERK的激活减弱了ER蛋白质合成,进而导致NF-κB抑制物(IκB)的合成减少,从而导致炎症反应[20-21]。另有研究表明,PERK直接磷酸化的第2个底物核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2),这有助于细胞氧化还原动态平衡和存活[32]

1.3 ATF6信号通路

ATF6属于Ⅱ型跨膜蛋白,由于未折叠和/或错误折叠蛋白质的增加,它与GRP78解离并进入高尔基体,首先在其腔域被位点1蛋白酶(site-1-protease,S1P)切割,然后在跨膜区被位点2蛋白酶(S2P)切割[33],切割后的ATF6易位到细胞核,在细胞核内诱导与优化蛋白质折叠、成熟和分泌有关基因的表达,如XBP1和ER伴侣蛋白[GRP78和葡萄糖调节蛋白94(GRP94)],以此恢复蛋白质正确折叠[34-35],同时,激活转录因子6α(ATF6α)还与XBP1异源二聚,产生ERAD成分,减少ER中未折叠和/或错误折叠蛋白质积累,进而恢复ER稳态[36]。如果ER稳态不能恢复,ATF6α则诱导CHOP基因表达,促进细胞凋亡[37]
综上所述,当细胞出现ERS时,UPR可通过介导IRE1、PERK和ATF6信号通路,减少ER中未折叠和/或错误折叠蛋白质积累,继而恢复ER功能与稳态;当出现长时间或者严重ERS,且超过自身调节能力时,细胞凋亡途径被激活,继而清除受损的细胞以维持机体稳态(图1)。
图1 UPR信号通路

Cell membrane:细胞膜;Endoplasmic reticulum:内质网;Unfold protein:未折叠蛋白;Misfold protein:错误折叠蛋白;BiP:结合免疫球蛋白 binding immunoglobulin protein;IRE1:肌醇需要激酶1 inositol-requiring kinase 1;PERK:蛋白激酶受体样内质网激酶 protein kinase receptor like endoplasmic reticulum kinase;ATF6:激活转录因子6 activating transcription factor 6;TRAF2:肿瘤坏死因子受体相关因子2 tumor necrosis factor receptor-associated factor 2;ASK1:凋亡信号调节激酶1 apoptosis signal-regulating kinase 1;NF-κB:核因子-κB nuclear factor-κB;JNK:c-Jun N末端激酶 c-Jun N-terminal kinase;Inflammation:炎症;RNAse activity:RNA酶活性;RIDD:IRE1依赖性衰变 IRE1-dependent decay;mRNA decay:mRNA衰减;XBP1:X-盒结合蛋白1 X-box binding protein 1;Splicing:剪切;Translation:翻译;ERAD:内质网相关蛋白降解 ER-associated protein degradation;Promote protein degradation:促进蛋白质降解;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;Antioxidant activity:抗氧化活性;eIF2α:真核翻译起始因子2α eukaryotic translation initiation factor 2α;IκB:NF-κB抑制物;ATF4:激活转录因子4 activating transcription factor 4;GADD34:生长停滞和DNA损伤诱导蛋白34 growth arrest and DNA damage-inducible protein 34;CHOP:CCAAT/增强子结合蛋白同源蛋白 CCAAT/enhancer-binding protein homologous protein;TRB3:端粒重复序列结合因子 telomere repeat binding factor 3;DR5:死亡受体5 death receptor 5;Ero1α:ER氧化酶1α ER oxidase 1α;Bim:B细胞淋巴瘤2相互作用细胞死亡介质 B cell lymphoma 2 interacting mediator of cell death;Bcl2:B细胞淋巴瘤2 B cell lymphoma 2;Apoptosis:凋亡;Golgi:高尔基体;S1P:位点1蛋白酶 site-1-protease;S2P:位点2蛋白酶 site-2-protease;ATF6N:裂解ATF6 Cleaved ATF6;GRP78:葡萄糖调节蛋白78 glucose regulated protein 78;GRP94:葡萄糖调节蛋白94 glucose regulated protein 94;Optimization (protein fold maturatin and secretion):优化蛋白折叠成熟和分泌;P:磷 phosphorus;Nucleus:细胞核。

Fig.1 Signaling pathway of UPR

2 槲皮素基于ERS信号通路对机体健康的影响

ER是调节钙稳态、脂质代谢以及蛋白质合成、折叠、加工、修饰、转运的场所,是细胞维持机体正常的生理功能必不可少的细胞器。槲皮素可通过增强ERS信号,破坏癌细胞ER稳态,以促进癌细胞凋亡,降低机体患癌症的风险;通过减弱ERS信号,维持正常机体细胞ER稳态,减轻机体的不良应激反应,减少肝脏疾病、神经系统疾病、胰腺疾病、心血管疾病、肠道疾病和肾脏疾病等的发生,进而减少机体损伤,让机体得以维持良好的生理功能,最终保持机体健康。

2.1 槲皮素对癌症的影响

槲皮素可通过增强ERS信号引发多种癌细胞的凋亡和/或自噬。槲皮素(20 μmol/L)可增加顺铂对卵巢癌C13*和P-ris细胞的细胞毒性,诱导其细胞凋亡,其原因可能与GRP78、CHOP、p-IRE1α、p-JNK、p-eIF2α、ATF4、ATF6 p50的蛋白表达以及XBP1的mRNA剪切上调有关[38]。在另一项关于人卵巢癌OV2008细胞的研究表明,槲皮素(100 μmol/L)通过p53依赖性PERK途径增加了癌细胞对电离辐射的敏感性,它通过增加p-eIF2α和CHOP蛋白表达,继而介导Bcl2/B细胞淋巴瘤2相关X蛋白(B cell lymphoma 2-associated X protein,Bax)的比例促进细胞凋亡[39]。槲皮素(150 μmol/L)还可诱导前列腺癌PC-3细胞ERS(表现为CHOP、ATF4α、IRE1α和GRP78蛋白表达上调),同时将细胞周期阻滞在G0/G1期,并促进其细胞凋亡,其原因可能是槲皮素一方面通过降低细胞周期蛋白D(CyclinD)和CyclinE、细胞分裂周期因子25和细胞周期蛋白依赖性激酶2的蛋白表达,同时增加G0/G1期细胞周期阻滞相关蛋白p18、p21、p27和p53的表达;另一方面降低Bcl2、聚腺苷二磷酸核糖聚合酶(poly ADP-ribose polymerase,PARP)和半胱天冬酶3(Caspase3)前体的蛋白表达,并提高凋亡诱导因子(apoptosis-inducing factor,AIF)和核酸内切酶G(endonuclease G,EndoG)、Bax、细胞色素c(Cytoc)和Caspase9等细胞凋亡相关蛋白表达[40]。此外,槲皮素(20、40和80 μmol/L)还以剂量依赖性增加宫颈癌Hela细胞的凋亡率,与细胞凋亡结果一致的是,它还上调了Caspase3、GRP78、IRE1、p-PERK、c-ATF6、CHOP和Bax的蛋白表达,下调了CyclinD1的蛋白表达,这提示槲皮素可能通过诱导细胞ERS,从而促进宫颈癌HeLe细胞凋亡[41]。在人口腔癌SAS细胞中,槲皮素(40 μmol/L)可通过提高B细胞淋巴瘤2蛋白拮抗剂、B细胞淋巴瘤2同源(BH)3相互作用结构域死亡激动剂[B-cell lymphoma 2 homology (BH) 3-interacting domain death agonist,Bid]、B细胞淋巴瘤2相关死亡启动子、EndoG、AIF、Cytoc和PARP蛋白表达,下调Bcl2和Bcl-x蛋白表达,增加细胞表面死亡受体肿瘤坏死因子相关细胞凋亡诱导配体、Fas配体、Fas和Fas相关死亡结构域蛋白表达以及ERS相关蛋白激活转录因子6α/β(ATF6α/β)、XBP1、IRE1α和GRP78蛋白表达,进而介导线粒体、细胞表面死亡受体和ERS途径,共同刺激其细胞凋亡[42]。另有研究发现,槲皮素(100 mg/kg)还对小鼠异种移植人宫颈癌Hela细胞的生长具有明显的抑制作用,其机制可能是通过诱导PERK和eIF2α蛋白磷酸化,提高ATF4和CHOP蛋白表达,从而增加癌细胞凋亡率,减少癌组织大小[43]。如上所述,槲皮素在癌症治疗中显示出巨大的潜力,其可能具有通过调节ERS信号通路来抑制癌症发展的特性(图2)。
图2 槲皮素在ERS诱导的癌细胞死亡中主要分子靶点

Cell membrane:细胞膜;FasL:Fas配体 Fas ligand;Fas:死亡因子;FADD:Fas相关死亡结构域 Fas-associated protein with death domain;Procaspase8:半胱天冬酶8前体;Caspase3:半胱天冬酶3;Caspase8:半胱天冬酶8;Caspase9:半胱天冬酶9;Caspase12:半胱天冬酶12;TRAIL:肿瘤坏死因子相关细胞凋亡诱导配体 TNF-related apoptosis-inducing ligand;TRAILR:肿瘤坏死因子相关细胞凋亡诱导配体受体 TNF-related apoptosis-inducing ligand receptor;Bid:B细胞淋巴瘤2同源(BH)3相互作用结构域死亡激动剂 B-cell lymphoma 2 homology (BH) 3-interacting domain death agonist;Bax:B细胞淋巴瘤2相关X蛋白 B cell lymphoma 2-associated X protein;Bcl2:B细胞淋巴瘤2 B cell lymphoma 2;ΔΨm:线粒体膜电位;Cytoc:细胞色素c;AIF:凋亡诱导因子 apoptosis-inducing factor;EndoG:核酸内切酶G endonuclease G;APAF1:凋亡蛋白酶激活因子 apoptotic protease activating factor 1;PARP:聚腺苷二磷酸核糖聚合酶 poly ADP-ribose polymerase;Ca2+:钙离子;ERS:内质网应激 endoplasmic reticulum stress;IRE1:肌醇需要激酶 inositol-requiring kinase 1;PERK:蛋白激酶受体样内质网激酶 protein kinase receptor like endoplasmic reticulum kinase;ATF6:激活转录因子6 activating transcription factor 6;GRP78:葡萄糖调节蛋白78 glucose regulated protein 78;CHOP:CCAAT/增强子结合蛋白同源蛋白 CCAAT/enhancer-binding protein homologous protein;CyclinD:细胞周期蛋白D;CyclinE:细胞周期蛋白E;CDK2:细胞周期蛋白依赖性激酶2 cyclin-dependent kinase 2;p53:抑癌基因;p21:抑癌基因;Cell cycle progression:细胞周期进程;Apoptosis:凋亡;Quercetin:槲皮素。

Fig.2 Major molecular targets of querceitn in ERS-induced cancer cell death

2.2 槲皮素对肝脏和胰腺疾病的影响

肝脏作为营养物质代谢和氧化还原的主要场所,对维持机体健康具有非常重要的作用。在体外非酒精性脂肪肝模型中的研究表明,槲皮素(10 μmol/L)可降低活性氧(reactive oxygen species,ROS)产生、脂质积累和诱导型一氧化氮合酶(inducible nitric oxide synthase,iNOS)诱导,并缓解ERS和线粒体损伤,其原因可能与槲皮素增加线粒体膜电位(ΔΨm),降低ERS相关伴侣蛋白GRP58、GRP78、氧调节蛋白150和内质网定位DnaJ同系物4的mRNA表达水平以及ERS相关辅助伴侣蛋白ATF4、内质网降解增强α-甘露糖苷酶样蛋白1和CHOP的mRNA表达水平,同时降低iNOS的mRNA表达水平有关[44]。在体内非酒精性脂肪肝模型中的研究显示,槲皮素(100 mg/kg BW)可通过激活IRE1α/XBP1s信号通路,来促进肝脏极低密度脂蛋白组装和脂肪吞噬,进而改善高脂饮食诱导的小鼠非酒精性脂肪肝[45]
在HepG2细胞中的研究发现,槲皮素(5 μg/mL)可通过抑制NF-κB磷酸化,来限制肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)的基因转录,继而阻断TNF-α诱导的ERS和炎症反应,改善肝脏胰岛素抵抗[46]。此外,槲皮素还可抗肝细胞纤维化,槲皮素(20 μmol/L)可能通过诱导ERS,增加p-PERK和p-IRE1以及裂解的(Cleaved)ATF6蛋白表达,上调钙连蛋白和CHOP的mRNA和蛋白表达水平,进而诱导Bcl2下调和Bax上调,促使Bax/Bcl2比值增加,继而刺激Cytoc从线粒体释放到细胞质中,最终增加Cleaved caspase9和Cleaved caspase3以及Cleaved PARP1的蛋白表达,激活Caspases级联反应,促使其细胞凋亡,减少肝星状细胞向肌成纤维细胞的转化[47]。同时,槲皮素(25和50 mg/kg)可能通过降低肝脏ROS含量,提高肝脏总抗氧化能力,增加肝脏中磷酸肌醇-3-激酶(phosphatidylinositol-3-kinase,PI3K)、蛋白激酶B(protein kinase B,PKB/Akt)的磷酸化,并降低GRP78、ATF4、p-IRE1和p-JNK的蛋白表达,继而有效抑制铅诱导的大鼠肝脏ERS和氧化损伤[48]。另有研究表明,槲皮素(50和100 mg/kg)可通过减少大鼠肝脏氧化应激,继而减轻其介导的ERS反应,降低GRP78、PERKeIF2αATF4、CHOPIRE1αXBP1和ATF6的mRNA和蛋白表达水平,从而减少Caspase12、Caspase3和Bax的mRNA和蛋白表达水平,增加Bcl2的mRNA和蛋白表达水平,最终有效减少镉引起的细胞凋亡[49]
在糖尿病大鼠模型中发现,槲皮素(50 mg/kg BW)可通过缓解胰腺ERS,来上调内皮型一氧化氮合酶蛋白表达,从而恢复内皮细胞功能,减少糖尿病并发症的发生[50]。槲皮素还可通过抑制ERS、氧化应激和硝化应激反应,继而降低胰腺内皮素-1(endothelin-1,ET-1)蛋白表达,增加胰腺血管内皮生长因子和血管内皮生长因子受体2蛋白表达,从而改善糖尿病大鼠的内皮功能障碍,降低血糖并改善胰岛素分泌[15]。另有研究报道,槲皮素(200 mg/kg)可能通过下调IRE1αXBP1s和CCAAT/增强子结合蛋白α/β的基因和蛋白表达,继而下调急性胰腺炎大鼠胰腺中NF-κB、白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-6(IL-6)和TNF-α的蛋白表达,减轻高脂饮食诱发的大鼠胰腺炎症损伤[51]。同时,槲皮素还可改善高脂饮食和链脲佐菌素引起的大鼠高血糖和胰岛素抵抗,其机制可能是减轻胰腺ERS、氧化应激、炎症反应和β细胞死亡[52]。总的来说,这些研究表明,槲皮素可通过调节IRE1、PERK和ATF6信号通路来治疗此类疾病。

2.3 槲皮素对神经系统疾病的影响

阿尔茨海默症(Alzheimer's disease,AD)是一种认知神经退行性疾病,淀粉样β(amyloid β,Aβ)蛋白、tau蛋白过度磷酸化、细胞内神经原纤维缠结等是其组织病理学标志物[53]。在AD小鼠模型中的研究发现,槲皮素(5 g/kg)可通过上调GADD34的mRNA和蛋白表达水平,来下调p-eIF2α和ATF4的蛋白表达,继而抑制早老素1(presenilin 1,PS1)的蛋白表达和Aβ的分泌,而PS1是一种天冬氨酸蛋白酶,参与Aβ斑块的形成,这些结果说明,槲皮素可以延缓AD初级阶段的记忆退化[54]。槲皮素(50 mg/kg)还可通过增强腺苷酸活化蛋白激酶(adenine monophosphate activated protein kinase,AMPK)的活化,继而抑制IRE1α和PERK磷酸化、NOD样受体热蛋白结构域相关蛋白3(NOD-like receptor thermal protein domain associated protein 3,NLRP3)蛋白表达和tau蛋白磷酸化,改善高脂饮食小鼠的认知障碍[55]。此外,槲皮素对辐射介导的ERS和炎症反应同样具有神经保护作用。在伽马射线辐射之前用槲皮素(50 μmol/L)预处理小鼠背根神经节神经元细胞,发现降低了受辐射细胞的GRP78、CHOPp-JNK和半胱天冬酶12(Caspase12)的mRNA表达水平,减少促炎细胞因子的产生和释放,继而提高了Tuj1的蛋白表达和神经营养因子脑源性神经营养因子的mRNA表达水平,从而帮助神经元缓解ERS,恢复正常的细胞稳态[56]。研究发现,槲皮素(25和50 mg/kg)还可通过增强Nrf2和Akt信号转导,抑制ERS和NF-κB信号,继而减轻长春新碱诱导的大鼠坐骨神经损伤和细胞凋亡[57]

2.4 槲皮素对心血管疾病的影响

槲皮素(10 μmol/L)已被证明,可通过促进AMPK磷酸化,来抑制ERS,减少ROS的产生,继而抑制硫氧还蛋白互作蛋白和NLRP3炎性小体激活,降低IL-1β的产生和释放,同时恢复Δψm和抑制Caspase3活性,最终保护人EA.hy-926内皮细胞免受棕榈酸酯诱导的炎症和凋亡损伤,以改善内皮功能障碍[58]。槲皮素(20 μmol/L)还被证明可以减少葡萄糖胺诱导的人脐静脉内皮细胞(HUVECs)凋亡,提高其细胞活力,并抑制细胞间黏附分子-1、血管细胞黏附分子-1和ET-1的蛋白表达,同时降低GRP78、p-PERK、p-JNK、CHOP和Cleaved caspase3蛋白表达,这些结果说明,槲皮素可能对葡萄糖胺诱导的细胞凋亡和炎症具有辅助治疗潜力,这可能部分是由于ERS的缓解[59]。研究表明,槲皮素还可通过降低GRP78和CHOP的mRNA表达水平,提高超氧化物歧化酶1(superoxide dismutase 1,SOD1)和过氧化氢酶(catalase,CAT)的mRNA表达水平,继而降低Bax/Bcl2的比值以及Cleaved caspase3和Cleaved PARP蛋白表达,以缓解继衣霉素诱导的HUVECs细胞凋亡和氧化损伤[60]。在柯萨奇病毒B3(coxsachievirus B3,CVB3)诱导乳鼠心肌细胞损伤中的研究显示,槲皮素(6.25 μg/mL)可提高心肌细胞存活率,降低细胞凋亡率和细胞上清液中IL-6、TNF-α、IL-1β含量,下调p-JNK、Caspase12、GRP78/94和CHOP蛋白表达水平,这提示槲皮素可能通过缓解ERS,继而减轻细胞凋亡和炎症损伤,最终改善CVB3感染引起的心肌细胞损伤[61]。Arumugam等[62]研究表明,槲皮素(10 mg/kg)可通过抑制ET-1/丝裂原活化蛋白激酶信号传导,来抑制大鼠心肌氧化应激和ERS,保护心脏免受自身免疫心肌炎,其机制可能与其减少GRP78、CHOP和Cytoc蛋白表达,并降低骨桥蛋白、转化生长因子-β(transforming growth factor-β,TGF-β)和还原型烟酰胺腺嘌呤二核苷酸磷酸氧化酶亚基蛋白表达有关,继而减少炎症细胞浸润、心肌纤维化和心肌细胞凋亡。此外,缺氧/复氧(hypoxia/reoxygenation,H/R)也能诱发心肌细胞和脑血管内皮细胞损伤。用槲皮素(150 mg/L)预处理可通过激活沉默信息调节蛋白1(silent information regulator protein 1,SIRT1)信号通路,从而提高谷胱甘肽含量及谷胱甘肽过氧化物酶、CAT和SOD活性,继而抑制H/R介导的ROS过度产生,减轻氧化应激损伤,同时通过激活SIRT1/跨膜B细胞淋巴瘤2相关X蛋白抑制剂基序6信号,来调节线粒体自噬和ERS,改善人心肌细胞对H/R的易感性,最终减少心肌细胞凋亡[63];槲皮素(1 μmol/L)还可通过激活Nrf2信号通路和抑制ERS,继而保护细胞免受H/R影响,促进细胞增殖、细胞迁移和血管生成,减少ΔΨm损伤、抑制细胞凋亡和维护维持血脑屏障的完整性[64]。因此,基于这些研究,槲皮素可用于减少ERS信号通路的影响并预防心血管疾病。

2.5 槲皮素对肠道健康的影响

肠道是动物机体与外界环境直接接触且表面积最大的器官,具有消化、吸收、代谢、免疫等生物学功能[65]。肠道上皮细胞不仅可选择性吸收营养物质、电解质和水,而且可限制肠腔中的病原微生物和有毒大分子透过肠道屏障进入机体内环境,继而维持动物机体良好的生理机能[66-67]。正常生理状况下,肠道细胞处于不断更新过程中,肠道细胞的凋亡和增殖保持着一个动态平衡[68]。任何形式的细胞凋亡增加或减少都可能导致肠黏膜萎缩和肠道通透性增加或癌症发生,进而导致肠道屏障功能障碍[69-72]
在Caco-2细胞中研究发现,槲皮素(100 μmol/L)可通过抑制CHOP基因表达和抑制Bax/Bcl2比值,并提高ΔΨm,进而减少吲哚美辛和双氯芬酸诱导的细胞凋亡,继而维护细胞屏障功能[73]。另有研究表明,槲皮素(5 μmol/L)还可减轻霉菌毒素(棒曲霉素、玉米赤霉烯酮以及玉米赤霉烯酮代谢物α/β-玉米赤霉烯醇)对HCT116的细胞毒性,抑制ROS生成和GRP78蛋白表达,继而同时恢复ΔΨm,抑制Caspase3活性,以减少细胞凋亡[74-76]。在另一项关于LS180细胞的研究中,槲皮素(150 μmol/L)则通过抑制PI3K信号通路,来减少GRP78和CHOP的mRNA及其蛋白表达水平,降低p-eIF2α蛋白和XBP1的mRNA剪切水平,进而抑制毒胡萝卜素诱导钙动力学失调及其介导的细胞ERS[77]。这些研究表明,槲皮素可通过减少ERS对动物肠道带来的影响,有效维护动物肠道屏障功能和机体健康。

2.6 槲皮素对肾脏疾病的影响

不对称二甲基精氨酸(asymmetric dimethylarginine,ADMA)是一种内源性一氧化氮(nitric oxide,NO)合酶抑制剂,可抑制NO合成,导致慢性肾脏疾病、心血管疾病等疾病的发生和发展[78]。有研究表明,槲皮素(20 μmol/L)可通过降低p-PERK、ATF4、CHOP、IRE1和p-JNK的蛋白表达,继而抑制ADMA诱导的肾小球内皮细胞凋亡和TGF-β蛋白表达,进而发挥抗肾纤维化作用[79]。槲皮素(5 μmol/L)还可通过抑制棒曲霉素和玉米赤霉烯酮诱导的ROS生成和GRP78蛋白上调,以重建ΔΨm,减弱Caspase3活性,进而缓解人胚胎肾HEK293细胞死亡[75-76]。在一项体内研究中发现,口服槲皮素(50 mg/kg)可改善饮食水中含有氯化镉的大鼠肾损伤和肾毒性,其机制可能是通过激活SIRT1信号通路,来增加Nrf2和降低NF-κB的核活性,进而提高肾脏锰超氧化物歧化酶(MnSOD)蛋白水平,降低肾脏ROS、TNF-α和IL-6含量,发挥其抗氧化和抗炎作用,改善氯化镉诱导的肾毒性,同时通过上调SIRT1转导途径诱导的Nrf2、NF-κB p65、eIF2α和XBP1s去乙酰化,从而降低CHOP的mRNA表达水平以及Bax、Caspase3和Cleaved caspase3的蛋白水平,最终改善氯化镉诱导的细胞凋亡和损伤[80]

2.7 槲皮素对其他器官/组织的影响

对小鼠颅盖骨和小鼠巨噬细胞RAW264.7的研究结果表明,槲皮素对钛颗粒诱导ERS和骨溶解均具有保护作用,在2种模型中,槲皮素均下调了PERK、IRE1、GRP78、CHOP、Caspase12和Caspase3蛋白表达,上调Bcl2蛋白表达,这提示槲皮素可能通过缓解ERS,减少细胞凋亡,继而抑制体内钛颗粒诱导的骨溶解[81]。在水牛颗粒细胞中的研究显示,槲皮素可通过缓解ERS,减轻由衣霉素诱导的细胞凋亡,而颗粒细胞的凋亡又是诱发卵泡闭锁的关键因素,因此,这可能是槲皮素延缓卵泡闭锁的一种新机制[82]。Weng等[83]研究发现,槲皮素可保护人视网膜色素上皮细胞ARPE-19免受过氧化氢诱导的细胞氧化损伤和凋亡,其原因可能与槲皮素增强细胞核内Nrf2活性和总Nrf2活性,降低GRP78、CHOP、p-eIF2α和Bax蛋白表达,提高Bcl2蛋白表达有关。此外,槲皮素还可通过miR-1306-5p/HSD17B7轴抑制氧化应激,并减轻大鼠睾丸或睾丸间质细胞的ERS,以改善高糖或链脲佐菌素引发的睾酮合成障碍和分泌紊乱[84]。总而言之,靶向分子ERS信号的治疗干预可能是治疗相关疾病的潜在策略。

3 小结

近几十年来,ERS在诱导疾病中的作用已被广泛揭示,包括心血管疾病、呼吸系统疾病、糖尿病、神经退行性疾病、癌症等。因此,调节ERS已被视为是上述疾病的潜在治疗策略。槲皮素在细胞和动物试验中都显示出一系列强大的药理特性,并且其药理保护作用涉及多个器官或系统,包括神经、心血管、肠道、肾脏等,并可能通过靶向ERS信号延缓甚至阻止此类疾病的发生和发展。
尽管槲皮素对ERS的缓解似乎至关重要,但需要注意的是,ERS是一个多方面的细胞过程,既可导致细胞适应和生存,也可根据触发因素的性质、持续时间和程度以及涉及的组织促进细胞凋亡。因此,槲皮素的有益作用可能是通过上述2条中的任何1条途径实现的,一方面,槲皮素可减轻导致ERS过长或过激的UPR反应,从而有助于延缓或防止细胞凋亡和组织损伤;另一方面,槲皮素诱导健康水平的ERS可以帮助细胞减轻未折叠蛋白质的负担,从而促进其存活。此外,槲皮素不仅可单独作为抗癌治疗剂使用,而且还可与常规抗癌治疗联合使用,通过增强ERS,以增强化疗的效果。
综上所述,虽然上述研究证实了槲皮素对ERS信号的调节作用,可能恢复细胞/组织的各种功能损伤,减少其功能紊乱,并可能对癌症有治疗作用,其展示出巨大的潜力和重要的研究意义。但大多集中于用人和小鼠等动物或细胞模型探讨槲皮素通过调节ERS信号对人类健康的作用机制,在畜禽动物上的研究鲜有报道,同时ERS具有明显的二元性,因而有必要进行更深入和更详细的研究。今后的研究方向可围绕槲皮素对畜禽动物ERS的影响,探究其具体作用机制;研究槲皮素是否可通过调控ERS信号,减少生产中对畜禽动物的不良应激反应,以改善畜禽动物肠道健康、减轻其各器官/组织的损伤、维护其各器官/组织的正常生理功能,最终让动物整体机能维持一个健康水平,继而让动物体内的各种生命活动得以进行,促进动物生长、提高生产水平。阐明槲皮素基于ERS途径对畜禽动物健康和疾病的影响,以确定槲皮素与系统性疾病之间的关系,并找到适当的措施来对抗或促进这种关系,为槲皮素作为一类功能性添加剂在动物生产中应用和维护动物机体健康提供新的理论依据。
[1]
IURLARO R, MUÑOZ-PINEDO C. Cell death induced by endoplasmic reticulum stress[J]. The FEBS Journal, 2016, 283(14):2640-2652.

DOI

[2]
WANG M, KAUFMAN R J. Protein misfolding in the endoplasmic reticulum as a conduit to human disease[J]. Nature, 2016, 529(7586):326-335.

DOI

[3]
ZHAO L H, ACKERMAN S L. Endoplasmic reticulum stress in health and disease[J]. Current Opinion in Cell Biology, 2006, 18(4):444-452.

DOI PMID

[4]
PEREIRA C M F. Crosstalk between endoplasmic reticulum stress and protein misfolding in neurodegenerative diseases[J]. International Scholarly Research Notices, 2013, 2013:256404.

[5]
REN J, BI Y G, SOWERS J R, et al. Endoplasmic reticulum stress and unfolded protein response in cardiovascular diseases[J]. Nature Reviews Cardiology, 2021, 18(7):499-521.

DOI PMID

[6]
MAGALLÓN M, CARRIÓN A E, BAÑULS L, et al. Oxidative stress and endoplasmic reticulum stress in rare respiratory diseases[J]. Journal of Clinical Medicine, 2021, 10(6):1268.

DOI

[7]
MUSTAPHA S, MOHAMMED M, AZEMI A K, et al. Potential roles of endoplasmic reticulum stress and cellular proteins implicated in diabesity[J]. Oxidative Medicine and Cellular Longevity, 2021, 2021:8830880.

[8]
NAIA L A, PINHO C M, DENTONI G, et al. Neuronal cell-based high-throughput screen for enhancers of mitochondrial function reveals luteolin as a modulator of mitochondria-endoplasmic reticulum coupling[J]. BMC Biology, 2021, 19(1):57.

DOI PMID

[9]
LI C H, ZHANG K, PAN G Z, et al. Dehydrodiisoeugenol inhibits colorectal cancer growth by endoplasmic reticulum stress-induced autophagic pathways[J]. Journal of Experimental & Clinical Cancer Research, 2021, 40(1):125.

[10]
MOON H, LERTPATIPANPONG P, HONG Y, et al. Nano-encapsulated quercetin by soluble soybean polysaccharide/chitosan enhances anti-cancer,anti-inflammation,and anti-oxidant activities[J]. Journal of Functional Foods, 2021, 87:104756.

[11]
WANG G L, LI Y C, LEI C, et al. Quercetin exerts antidepressant and cardioprotective effects in estrogen receptor α-deficient female mice via BDNF-AKT/ERK1/2 signaling[J]. The Journal of Steroid Biochemistry and Molecular Biology, 2021, 206:105795.

[12]
LIU Y, GONG W, YANG Z Y, et al. Quercetin induces protective autophagy and apoptosis through ER stress via the p-STAT3/Bcl-2 axis in ovarian cancer[J]. Apoptosis, 2017, 22(4):544-557.

DOI PMID

[13]
GNONI A, DI CHIARA STANCA B, GIANNOTTI L, et al. Quercetin reduces lipid accumulation in a cell model of NAFLD by inhibiting de novo fatty acid synthesis through the acetyl-CoA carboxylase 1/AMPK/PP2A axis[J]. International Journal of Molecular Sciences, 2022, 23(3):1044.

DOI

[14]
CHAKRABORTY J, PAKRASHI S, SARBAJNA A, et al. Quercetin attenuates copper-induced apoptotic cell death and endoplasmic reticulum stress in SH-SY5Y cells by autophagic modulation[J]. Biological Trace Element Research, 2022, 200(12):5022-5041.

DOI PMID

[15]
SUGANYA N, DORNADULA S, CHATTERJEE S, et al. Quercetin improves endothelial function in diabetic rats through inhibition of endoplasmic reticulum stress-mediated oxidative stress[J]. European Journal of Pharmacology, 2018, 819:80-88.

DOI PMID

[16]
BINDER P, WANG S Y, RADU M, et al. Pak2 as a novel therapeutic target for cardioprotective endoplasmic reticulum stress response[J]. Circulation Research, 2019, 124(5):696-711.

DOI PMID

[17]
ZHENG J Y, XU H, HUANG C L, et al. Quercetin protects against intestinal barrier disruption and inflammation in acute necrotizing pancreatitis through TLR4/MyD88/p38 MAPK and ERS inhibition[J]. Pancreatology, 2018, 18(7):742-752.

DOI

[18]
BYRD A E, BREWER J W. Intricately regulated:a cellular toolbox for fine-tuning XBP1 expression and activity[J]. Cells, 2012, 1(4):738-753.

DOI

[19]
TABAS I, RON D. Integrating the mechanisms of apoptosis induced by endoplasmic reticulum stress[J]. Nature Cell Biology, 2011, 13(3):184-190.

DOI PMID

[20]
ALMANZA A, CARLESSO A, CHINTHA C, et al. Endoplasmic reticulum stress signalling-from basic mechanisms to clinical applications[J]. The FEBS Journal, 2019, 286(2):241-278.

DOI

[21]
MALHI H, KAUFMAN R J. Endoplasmic reticulum stress in liver disease[J]. Journal of Hepatology, 2011, 54(4):795-809.

DOI PMID

[22]
LEI K, DAVIS R J. JNK phosphorylation of Bim-related members of the Bcl2 family induces Bax-dependent apoptosis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2003, 100(5):2432-2437.

DOI PMID

[23]
HARDING H P, ZHANG Y, RON D. Protein translation and folding are coupled by an endoplasmic-reticulum-resident kinase[J]. Nature, 1999, 397(6716):271-274.

DOI

[24]
HARDING H P, ZHANG Y H, BERTOLOTTI A, et al. Perk is essential for translational regulation and cell survival during the unfolded protein response[J]. Molecular Cell, 2000, 5(5):897-904.

DOI PMID

[25]
HARDING H P, ZHANG Y H, ZENG H, et al. An integrated stress response regulates amino acid metabolism and resistance to oxidative stress[J]. Molecular Cell, 2003, 11(3):619-633.

DOI PMID

[26]
VATTEM K M, WEK R C. Reinitiation involving upstream ORFs regulates ATF4 mRNA translation in mammalian cells[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(31):11269-11274.

[27]
SZEGEZDI E, LOGUE S E, GORMAN A M, et al. Mediators of endoplasmic reticulum stress-induced apoptosis[J]. EMBO Reports, 2006, 7(9):880-885.

DOI PMID

[28]
URRA H, DUFEY E, LISBONA F, et al. When ER stress reaches a dead end[J]. Biochimica et Biophysica Acta (BBA)-Molecular Cell Research, 2013, 1833(12):3507-3517.

DOI

[29]
LU M, LAWRENCE D A, MARSTERS S, et al. Opposing unfolded-protein-response signals converge on death receptor 5 to control apoptosis[J]. Science, 2014, 345(6192):98-101.

DOI PMID

[30]
LI G, MONGILLO M, CHIN K T, et al. Role of ERO1-α-mediated stimulation of inositol 1,4,5-triphosphate receptor activity in endoplasmic reticulum stress-induced apoptosis[J]. Journal of Cell Biology, 2009, 186(6):783-792.

[31]
MARCINIAK S J, YUN C Y, OYADOMARI S, et al. CHOP induces death by promoting protein synthesis and oxidation in the stressed endoplasmic reticulum[J]. Genes & Development, 2004, 18(24):3066-3077.

DOI

[32]
CULLINAN S B, ZHANG D, HANNINK M, et al. Nrf2 is a direct PERK substrate and effector of PERK-dependent cell survival[J]. Molecular and Cellular Biology, 2003, 23(20):7198-7209.

DOI PMID

[33]
SHEN J S, PRYWES R. Dependence of site-2 protease cleavage of ATF6 on prior site-1 protease digestion is determined by the size of the luminal domain of ATF6[J]. Journal of Biological Chemistry, 2004, 279(41):43046-43051.

DOI PMID

[34]
KOKAME K, KATO H, MIYATA T. Identification of ERSE-Ⅱ,a new cis-acting element responsible for the ATF6-dependent mammalian unfolded protein response[J]. Journal of Biological Chemistry, 2001, 276(12):9199-9205.

DOI

[35]
NAMBA T, ISHIHARA T, TANAKA K I, et al. Transcriptional activation of ATF6 by endoplasmic reticulum stressors[J]. Biochemical and Biophysical Research Communications, 2007, 355(2):543-548.

PMID

[36]
YAMAMOTO K, SATO T, MATSUI T, et al. Transcriptional induction of mammalian ER quality control proteins is mediated by single or combined action of ATF6α and XBP1[J]. Developmental Cell, 2007, 13(3):365-376.

DOI

[37]
CHIANG C K, HSU S P, WU C T, et al. Endoplasmic reticulum stress implicated in the development of renal fibrosis[J]. Molecular Medicine, 2011, 17(11/12):1295-1305.

DOI

[38]
YANG Z Y, LIU Y, LIAO J, et al. Quercetin induces endoplasmic reticulum stress to enhance cDDP cytotoxicity in ovarian cancer:involvement of STAT3 signaling[J]. The FEBS Journal, 2015, 282(6):1111-1125.

DOI

[39]
GONG C, YANG Z Y, ZHANG L Y, et al. Quercetin suppresses DNA double-strand break repair and enhances the radiosensitivity of human ovarian cancer cells via p53-dependent endoplasmic reticulum stress pathway[J]. OncoTargets and Therapy, 2018, 11:17-27.

DOI PMID

[40]
LIU K C, YEN C Y, WU R S C, et al. The roles of endoplasmic reticulum stress and mitochondrial apoptotic signaling pathway in quercetin-mediated cell death of human prostate cancer PC-3 cells[J]. Environmental Toxicology, 2014, 29(4):428-439.

DOI

[41]
HE C X, LU X H, LI J, et al. The effect of quercetin on cervical cancer cells as determined by inducing tumor endoplasmic reticulum stress and apoptosis and its mechanism of action[J]. American Journal of Translational Research, 2021, 13(5):5240-5247.

PMID

[42]
MA Y S, YAO C N, LIU H C, et al. Quercetin induced apoptosis of human oral cancer SAS cells through mitochondria and endoplasmic reticulum mediated signaling pathways[J]. Oncology Letters, 2018, 15(6):9663-9672.

[43]
脱淑梅, 张彦骅, 党云, 等. 槲皮素对子宫颈癌荷瘤小鼠移植瘤生长的影响及其机制[J]. 中国临床药理学杂志, 2021, 37(2):150-152,156.

TUO S M, ZHANG Y H, DANG Y, et al. Effects of quercetin on the growth of transplanted tumor in mice with cervical cancer and its mechanism[J]. The Chinese Journal of Clinical Pharmacology, 2021, 37(2):150-152,156. (in Chinese)

[44]
RAFIEI H, OMIDIAN K, BANDY B. Protection by different classes of dietary polyphenols against palmitic acid-induced steatosis,nitro-oxidative stress and endoplasmic reticulum stress in HepG2 hepatocytes[J]. Journal of Functional Foods, 2018, 44:173-182.

DOI

[45]
ZHU X H, XIONG T, LIU P Y, et al. Quercetin ameliorates HFD-induced NAFLD by promoting hepatic VLDL assembly and lipophagy via the IRE1a/XBP1s pathway[J]. Food and Chemical Toxicology, 2018, 114:52-60.

DOI PMID

[46]
PARK J, JUN W, LEE J, et al. Defensive effect of quercetin against tumor necrosis factor α-induced endoplasmic reticulum stress and hepatic insulin resistance in HepG2 cells[J]. Journal of Food and Nutrition Research, 2018, 6(8):518-524.

[47]
HE L W, HOU X B, FAN F T, et al. Quercetin stimulates mitochondrial apoptosis dependent on activation of endoplasmic reticulum stress in hepatic stellate cells[J]. Pharmaceutical Biology, 2016, 54(12):3237-3243.

DOI

[48]
LIU C M, ZHENG G H, MING Q L, et al. Protective effect of quercetin on lead-induced oxidative stress and endoplasmic reticulum stress in rat liver via the IRE1/JNK and PI3K/Akt pathway[J]. Free Radical Research, 2013, 47(3):192-201.

DOI PMID

[49]
WANG J C, DING L L, WANG K, et al. Role of endoplasmic reticulum stress in cadmium-induced hepatocyte apoptosis and the protective effect of quercetin[J]. Ecotoxicology and Environmental Safety, 2022, 241:113772.

[50]
SUGANYA N, MANI K P, SIREESH D, et al. Establishment of pancreatic microenvironment model of ER stress:quercetin attenuates β-cell apoptosis by invoking nitric oxide-cGMP signaling in endothelial cells[J]. The Journal of Nutritional Biochemistry, 2018, 55:142-156.

DOI

[51]
ZHENG J Y, WU J H, CHEN J, et al. Therapeutic effects of quercetin on early inflammation in hypertriglyceridemia-related acute pancreatitis and its mechanism[J]. Pancreatology, 2016, 16(2):200-210.

DOI PMID

[52]
GABALLAH H H, ZAKARIA S S, MWAFY S E, et al. Mechanistic insights into the effects of quercetin and/or GLP-1 analogue liraglutide on high-fat diet/streptozotocin-induced type 2 diabetes in rats[J]. Biomedicine & Pharmacotherapy, 2017, 92:331-339.

DOI

[53]
MORRIS M C, TANGNEY C C. Dietary fat composition and dementia risk[J]. Neurobiology of Aging, 2014,35 (Suppl.2):S59-S64.

[54]
HAYAKAWA M, ITOH M, OHTA K, et al. Quercetin reduces eIF2α phosphorylation by GADD34 induction[J]. Neurobiology of Aging, 2015, 36(9):2509-2518.

DOI PMID

[55]
CHEN J J, DENG X Y, LIU N, et al. Quercetin attenuates tau hyperphosphorylation and improves cognitive disorder via suppression of ER stress in a manner dependent on AMPK pathway[J]. Journal of Functional Foods, 2016, 22:463-476.

DOI

[56]
CHATTERJEE J, LANGHNOJA J, PILLAI P P, et al. Neuroprotective effect of quercetin against radiation-induced endoplasmic reticulum stress in neurons[J]. Journal of Biochemical and Molecular Toxicology, 2019, 33(2):e22242.

[57]
YARDIM A, KANDEMIR F M, OZDEMIR S, et al. Quercetin provides protection against the peripheral nerve damage caused by vincristine in rats by suppressing caspase 3,NF-κB,ATF-6 pathways and activating Nrf2,Akt pathways[J]. NeuroToxicology, 2020, 81:137-146.

DOI

[58]
WU J J, XU X S, LI Y, et al. Quercetin,luteolin and epigallocatechin gallate alleviate TXNIP and NLRP3-mediated inflammation and apoptosis with regulation of AMPK in endothelial cells[J]. European Journal of Pharmacology, 2014, 745:59-68.

DOI

[59]
CAI X X, BAO L, DING Y, et al. Quercetin alleviates cell apoptosis and inflammation via the ER stress pathway in vascular endothelial cells cultured in high concentrations of glucosamine[J]. Molecular Medicine Reports, 2017, 15(2):825-832.

DOI PMID

[60]
SUGANYA N, BHAKKIYALAKSHMI E, SURIYANARAYANAN S, et al. Quercetin ameliorates tunicamycin-induced endoplasmic reticulum stress in endothelial cells[J]. Cell Proliferation, 2014, 47(3):231-240.

DOI PMID

[61]
徐巧玲, 谢建达, 徐志峰, 等. 槲皮素通过抑制内质网应激减轻病毒性感染引起的心肌细胞损伤[J]. 中国老年学杂志, 2021, 41(9):1933-1936.

XU Q L, XIE J D, XU Z F, et al. Quercetin attenuates viral infection-induced cardiomyocyte injury by inhibits endoplasmic reticulum stress[J]. Chinese Journal of Gerontology, 2021, 41(9):1933-1936. (in Chinese)

[62]
ARUMUGAM S, THANDAVARAYAN R A, AROZAL W, et al. Quercetin offers cardioprotection against progression of experimental autoimmune myocarditis by suppression of oxidative and endoplasmic reticulum stress via endothelin-1/MAPK signalling[J]. Free Radical Research, 2012, 46(2):154-163.

DOI PMID

[63]
CHANG X, ZHANG T, MENG Q Y, et al. Quercetin improves cardiomyocyte vulnerability to hypoxia by regulating SIRT1/TMBIM6-related mitophagy and endoplasmic reticulum stress[J]. Oxidative Medicine and Cellular Longevity, 2021, 2021:5529913.

[64]
LI M T, KE J, GUO S F, et al. The protective effect of quercetin on endothelial cells injured by hypoxia and reoxygenation[J]. Frontiers in Pharmacology, 2021, 12:732874.

[65]
PABST R, RUSSELL M W, BRANDTZAEG P. Tissue distribution of lymphocytes and plasma cells and the role of the gut[J]. Trends in Immunology, 2008, 29(5):206-208.

DOI PMID

[66]
LUISSINT A C, PARKOS C A, NUSRAT A. Inflammation and the intestinal barrier:leukocyte-epithelial cell interactions,cell junction remodeling,and mucosal repair[J]. Gastroenterology, 2016, 151(4):616-632.

DOI

[67]
JACOBI S K, ODLE J. Nutritional factors influencing intestinal health of the neonate[J]. Advances in Nutrition, 2012, 3(5):687-696.

DOI PMID

[68]
WU Y P, TANG L, WANG B K, et al. The role of autophagy in maintaining intestinal mucosal barrier[J]. Journal of Cellular Physiology, 2019, 234(11):19406-19419.

DOI PMID

[69]
POCHARD C, GONZALES J, BESSARD A, et al. PGI2 inhibits intestinal epithelial permeability and apoptosis to alleviate colitis[J]. Cellular and Molecular Gastroenterology and Hepatology, 2021, 12(3):1037-1060.

DOI

[70]
WANG Z, ZHONG C S, CAO Y Y, et al. LncRNA DANCR improves the dysfunction of the intestinal barrier and alleviates epithelial injury by targeting the miR-1306-5p/PLK1 axis in sepsis[J]. Cell Biology International, 2021, 45(9):1935-1944.

DOI

[71]
FANG T T, YAO Y, TIAN G, et al. Chitosan oligosaccharide attenuates endoplasmic reticulum stress-associated intestinal apoptosis via the Akt/mTOR pathway[J]. Food & Function, 2021, 12(18):8647-8658.

[72]
LIU L, DONG W X, WANG S N, et al. Deoxycholic acid disrupts the intestinal mucosal barrier and promotes intestinal tumorigenesis[J]. Food & Function, 2018, 9(11):5588-5597.

[73]
BOONYONG C, VARDHANABHUTI N, JIANMONGKOL S. Natural polyphenols prevent indomethacin-induced and diclofenac-induced Caco-2 cell death by reducing endoplasmic reticulum stress regardless of their direct reactive oxygen species scavenging capacity[J]. Journal of Pharmacy and Pharmacology, 2020, 72(4):583-591.

DOI PMID

[74]
SALEM I B, PROLA A, BOUSSABBEH M, et al. Activation of ER stress and apoptosis by α- and β-zearalenol in HCT116 cells,protective role of Quercetin[J]. NeuroToxicology, 2016, 53:334-342.

DOI

[75]
BOUSSABBEH M, PROLA A, SALEM I B, et al. Crocin and quercetin prevent PAT-induced apoptosis in mammalian cells:involvement of ROS-mediated ER stress pathway[J]. Environmental Toxicology, 2016, 31(12):1851-1858.

DOI

[76]
SALEM I B, PROLA A, BOUSSABBEH M, et al. Crocin and quercetin protect HCT116 and HEK293 cells from zearalenone-induced apoptosis by reducing endoplasmic reticulum stress[J]. Cell Stress & Chaperones, 2015, 20(6):927-938.

DOI

[77]
NATSUME Y, ITO S, SATSU H, et al. Protective effect of quercetin on ER stress caused by calcium dynamics dysregulation in intestinal epithelial cells[J]. Toxicology, 2009, 258(2/3):164-175.

DOI

[78]
HSU C N, TAIN Y L. Asymmetric dimethylarginine (ADMA) in pediatric renal diseases:from pathophysiological phenomenon to clinical biomarker and beyond[J]. Children, 2021, 8(10):837.

DOI

[79]
GUO W K, DING J X, ZHANG A H, et al. The inhibitory effect of quercetin on asymmetric dimethylarginine-induced apoptosis is mediated by the endoplasmic reticulum stress pathway in glomerular endothelial cells[J]. International Journal of Molecular Sciences, 2014, 15(1):484-503.

DOI PMID

[80]
ALSHAMMARI G M, AL-QAHTANI W H, ALFARIS N A, et al. Quercetin alleviates cadmium chloride-induced renal damage in rats by suppressing endoplasmic reticulum stress through SIRT1-dependent deacetylation of Xbp-1s and eIF2α[J]. Biomedicine & Pharmacotherapy, 2021, 141:111862.

[81]
ZHANG L B, TIAN Z B, LI W, et al. Inhibitory effect of quercetin on titanium particle induced endoplasmic reticulum stress related apoptosis and in vivo osteolysis[J]. Bioscience Reports, 2017, 37(4):BSR20170961.

[82]
YANG W H, LIU R F, SUN Q Q, et al. Quercetin alleviates endoplasmic reticulum stress-induced apoptosis in buffalo ovarian granulosa cells[J]. Animals:an Open Access Journal From MDPI, 2022, 12(6):787.

[83]
WENG S S, MAO L, GONG Y Y, et al. Role of quercetin in protecting ARPE-19 cells against H2O2-induced injury via nuclear factor erythroid 2 like 2 pathway activation and endoplasmic reticulum stress inhibition[J]. Molecular Medicine Reports, 2017, 16(3):3461-3468.

DOI

[84]
WANG D, LI Y, ZHAI Q Q, et al. Quercetin ameliorates testosterone secretion disorder by inhibiting endoplasmic reticulum stress through the miR-1306-5p/HSD17B7 axis in diabetic rats[J]. Bosnian Journal of Basic Medical Sciences, 2022, 22(2):191-204.

文章导航

/