综述

黄酮类化合物对动物胃肠道健康调控作用的研究进展

  • 李兰柱 , 1 ,
  • 胡红莲 2 ,
  • 高民 2 ,
  • 孙满吉 , 1, *
展开
  • 1 东北农业大学动物科学技术学院,哈尔滨 150030
  • 2 内蒙古自治区农牧业科学院动物营养与饲料研究所,呼和浩特 010031
*孙满吉,教授,硕士生导师,E-mail:

李兰柱(1998—),女,黑龙江兰西人,硕士研究生,从事反刍动物饲料与营养学研究。E-mail:

收稿日期: 2022-08-03

  网络出版日期: 2023-03-16

基金资助

国家自然科学基金(32160805)

内蒙古农牧业创新基金(2021CXJJM02)

内蒙古自治区科技计划(2021GG0028)

现代农业产业技术体系资助(CARS-36)

Research Progress in Regulatory Effects of Flavonoids on Animal Gastrointestinal Health

  • LI Lanzhu , 1 ,
  • HU Honglian 2 ,
  • GAO Min 2 ,
  • SUN Manji , 1, *
Expand
  • 1 College of Animal Science and Technology, Northeast Agricultural University, Harbin 150030, China
  • 2 Institute of Animal Nutrition and Feed, Inner Mongolia Academy of Agricultural & Animal Husbandry Sciences, Hohhot 010031, China
*professor, E-mail:

Received date: 2022-08-03

  Online published: 2023-03-16

摘要

胃肠道是动物机体内最大且功能最复杂的器官,是机体防御的最前线。胃肠道结构与功能的完整对维持动物健康极为重要。黄酮类化合物具有天然、安全和无残留等特性,可以改善动物生产性能、调节胃肠道健康等,这使其不仅有望成为极具开发潜力的替抗成员,而且因此能开发出更多有益于动物健康的调控产品。本文就黄酮类化合物对动物胃肠道形态结构、屏障防御以及重要生理防御功能的调控作用进行综述,旨在为深入了解黄酮类化合物对动物胃肠道健康的调控作用及其在动物生产的应用开发提供参考。

本文引用格式

李兰柱 , 胡红莲 , 高民 , 孙满吉 . 黄酮类化合物对动物胃肠道健康调控作用的研究进展[J]. 动物营养学报, 2023 , 35(3) : 1444 -1453 . DOI: 10.12418/CJAN2023.137

Abstract

Gastrointestinal tract is the largest and most complex organ in animal body, which is the front line of the body's defense. The structural and function integrity of the gastrointestinal tract is essential for maintaining animal health. Flavonoids are natural, safe and residue-free, which can improve the performance and regulate the gastrointestinal health of animals, so that they are not only expected to become a potential alternative to antibiotics, but also to develop more regulatory products beneficial to animal health. This article reviewed the regulatory effects of flavonoids on gastrointestinal morphology, barrier defense and important physiological defense functions, in aiming to provide a reference for further understanding the regulatory effects of flavonoids on animal gastrointestinal health and their application in animal production.

胃肠道表面积很大,其内有数以万计的微生物定植,是机体菌群的最大储藏库,具有强大的功能,如营养物质的消化吸收、免疫调节和抵御外界病原体的入侵等[1]。长久以来,动物胃肠道健康问题一直备受关注,成为影响畜牧业发展的焦点;而一直以来抗生素是治疗动物胃肠道疾病的主要手段,但传统的饲用抗生素由于耐药性和药物残留等问题严重影响畜牧业的健康发展,甚至对人类健康、食品安全以及环境构成巨大威胁,被全球各国陆续禁止使用。我国自2020年起也迎来了“全面禁抗”时代,饲料端禁抗和养殖端减抗、限抗将成为常态。因此,寻找绿色安全、经济实惠以及便于生产端使用的抗生素替代品改善动物胃肠道健康成为了当前的研究热点。黄酮类化合物因其具有绿色天然、安全和无生物性残留等特性不仅有望成为饲用抗生素的理想替代物,而且还具有成为较多有益于动物健康调控产品的开发潜力。鉴于黄酮类化合物种类繁多、成分复杂以及研究资料较零散,目前对动物胃肠道健康调控的作用机制尚不清晰,因此,本文总结了近年来黄酮类化合物对胃肠道健康调控的研究进展,重点阐述黄酮类化合物对动物胃肠道形态结构、物理防御、微生态防御、免疫防御、化学防御系统的调节以及炎症与氧化应激的缓解作用,旨在为黄酮类化合物的研究、开发和应用提供参考。

1 黄酮类化合物简介
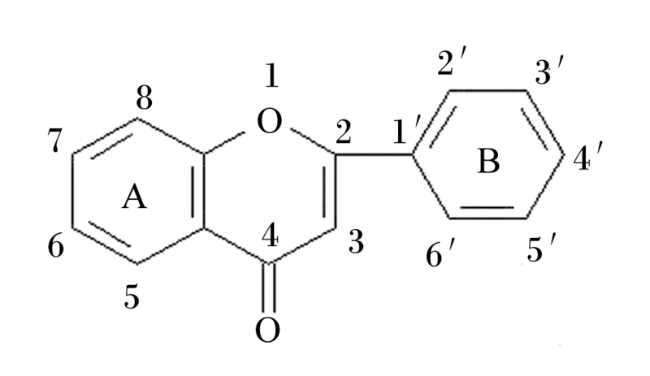
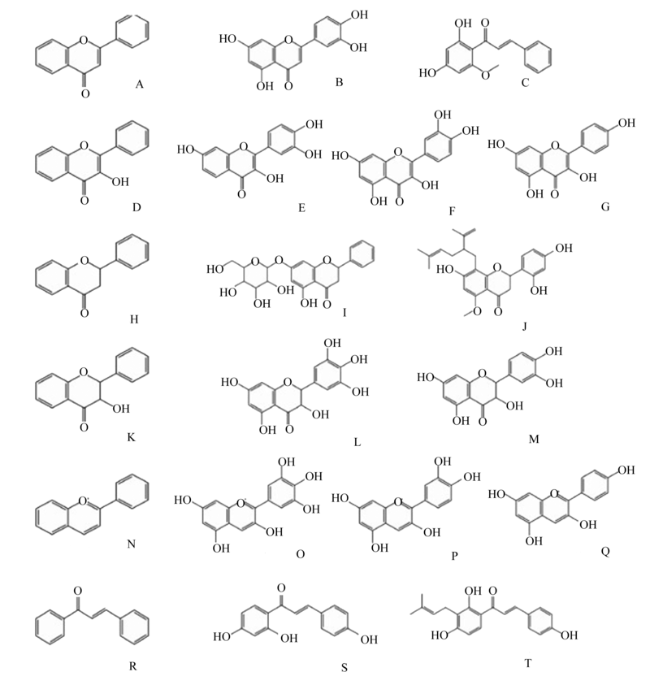
黄酮类化合物是一种天然酚类物质,广泛存在于各种植物中(蔬菜、水果、谷物和茶叶等)。类黄酮是指2个苯环通过中心3个碳原子与酚羟基相互连接而形成的一系列化合物,这类化合物均以2-苯基色原酮为母核结构(图1)[2]。根据母核连接的黄酮苷元以及功能基团不同,黄酮类化合物主要分为黄酮、黄酮醇、黄烷醇、二氢黄酮和查尔酮等(图2)[3]。黄酮类化合物作为植物的次生代谢产物,其资源丰富、来源广泛,并具有强大的抗炎、抑菌、抗氧化和调节动物胃肠道健康等诸多功能,且毒性相对较低,可以安全食用[4]
图1 黄酮类化合物母核(2-苯基色原酮)

Fig.1 Parent nucleus of flavonoids (2-phenylchromone)[2]

图2 黄酮类化合物及其代表性化合物的结构

A:黄酮 flavone;B:毛地黄黄酮 luteolin;C:小豆蔻皂苷 cardamonin;D:黄酮醇 flavonol;E:漆黄素 fisetin;F:槲皮素 quercetin;G:山柰酚 kaempferol;H:黄烷酮 flavanone;I:乔松苷 pinocembroside;J:苦参素 kurarinone;K:二氢黄酮醇 flavanonol;L:二氢杨梅素 dihydromyricetin;M:花旗松素 taxifolin;N:花青素 anthocyanidin;O:花翠素 delphinidin;P:花青色素 cyanidin;Q:花葵素 pelargonidin;R;查耳酮 chalcone;S:异甘草素 isoliquiritigenin;T:异补骨脂酮 corylifolinin。

Fig.2 Structures of flavonoids and their representative compounds[3]

2 黄酮类化合物对动物胃肠道健康的调控

胃肠道是动物机体内面积最大、功能最复杂的器官,不仅是营养物质吸收代谢的主要场所,同时也担负着保护宿主免受腔内容物和病原体侵害的挑战、维持动物机体健康的重任[5]。因此,胃肠道健康对于动物健康、高效和安全养殖具有重要意义。而胃肠道健康涉及范围很广,包含营养物质的消化吸收、胃肠道形态结构的完整和微生物群落的稳态等多种生理及防御功能,这些在维持动物机体健康、抵御感染及非感染性疾病上发挥极其重要的作用。

2.1 对胃肠道上皮形态结构的调控

胃肠道上皮形态结构是衡量动物胃肠道健康状况的重要指标之一,其完整性对营养物质消化吸收以及发挥屏障功能尤为重要。瘤胃是反刍动物独有的消化器官,同时也参与构成机体防御体系,保护机体免受瘤胃内以及外界微生物入侵。瘤胃上皮位于最内层,其主要由角质层、颗粒层、棘层和基底层组成,其中角质层位于最外侧直接与食糜接触,是保护内层细胞免受损伤的第一道屏障[6]。黄酮类化合物可以改善瘤胃健康,Paniagua等[7]报道,饲喂柑橘类黄酮的肉牛瘤胃壁颜色较浅,乳头密集,秃头区少。而桑叶黄酮对断奶前犊牛瘤胃乳头的长度、宽度和肌层没有影响,这可能与瘤胃发育不完全以及桑叶黄酮对瘤胃微生物活性或多样性的影响较弱有关[8]。肠道黏膜层的褶皱、绒毛是动物消化道的主要组成部分,在保证营养物质的消化吸收和维持胃肠道稳态中发挥着重要作用[9]。近年来的研究表明,黄酮类化合物可以促进肠道绒毛的发育,维持和改善肠道形态结构的完整性。Xue等[10]研究发现,饲粮添加0.06%的葛根黄酮可提高肉鸡小肠的绒毛高度,降低隐窝深度,显著提高回肠绒毛高度/隐窝深度值。You等[11]、Li等[12]和Yuan等[13]的研究也同样证实,甘草黄酮、大豆异黄酮和杜仲黄酮可提高仔猪空肠绒毛高度和绒毛高度/隐窝深度值。肠道绒毛高度增加能够增加肠绒毛单位面积的细胞数,增强肠道对营养物质的吸收能力;而绒毛高度/隐窝深度比值综合反映了肠道的功能状态及健康程度,比值提高时,肠道上皮细胞数量增加,肠道吸收面积增大,肠道整体消化吸收能力增强。由此可见,黄酮类化合物可以通过增加肠道上皮细胞数量、增大吸收面积,促进肠道的消化吸收功能,改善肠道屏障结构的完整性,有益于肠道健康。

2.2 对胃肠道防御屏障的调控

2.2.1 对胃肠道物理防御屏障的调控

物理屏障也称为机械屏障,是胃肠道最重要的一道基础屏障,其完整性对动物健康和生产性能极为重要,因为它是一种具有高度选择性的“过滤器”,不仅允许水、离子和小分子营养物质等从肠腔进入到内环境参与机体内部循环,还可以防止毒素和病原体从胃肠道渗透到血液中,发挥着防御的功能[14]。这道防御性屏障在肠道屏障结构中占据着中心地位,其主要由肠黏膜表面的黏液层、肠上皮细胞及其紧密连接、黏膜下固有层等组成。黏液层是上皮机械屏障的第一道防线,其主要成分为黏蛋白,黏蛋白产量的减少会导致肠道屏障渗漏,使微生物、病原体和一些潜在的抗原性大分子穿过肠道屏障[15]。黄酮类化合物可通过增加杯状细胞的数量或刺激杯状细胞中黏蛋白的产生,发挥对胃肠道屏障的保护作用,如葛根素能够通过提高杯状细胞的密度以及黏液层的厚度增强肠道物理防御的完整性[16]。黏蛋白2(MUC2)作为肠道杯状细胞分泌的一种高度糖基化黏蛋白,在阻止致病菌的入侵、协助肠道益生菌的定植上发挥着重要作用[17]。蔓越莓原花青素能增加杯状细胞数量,并提升杯状细胞的主要产物MUC2和回肠白细胞介素-4(IL-4)、白细胞介素-13(IL-13)水平,以维护肠道物理屏障的稳定性[18]。胃肠道上皮物理防御主要通过细胞间的连接复合体在细胞旁进行连接构成。连接复合体由不同的蛋白质基序组成,包括紧密连接、黏附连接、缝隙连接和桥粒连接[19],以形成胃肠道上皮防御体系结构。其中紧密连接是调节这一屏障的关键组成成分,决定胃肠道对病原菌以及营养物质的通透性。紧密连接蛋白——封闭蛋白(occludin)和闭锁小带蛋白-1(ZO-1)可以形成稳定的连接,在维系肠道物理屏障的完整性中发挥着关键作用。体内和体外的多项研究表明,黄酮类化合物可以上调紧密连接蛋白的表达,降低上皮细胞通透性,从而维持胃肠道上皮物理防御的完整性。Mayangsari等[20]在体外研究中发现,添加50 μmol/L 3,5,7,3',4'-五甲氧基黄酮(PMF)可以显著上调肠道紧密连接蛋白ZO-1、闭合蛋白-3(caludin-3)和闭合蛋白-4(caludin-4)的表达,增强Caco-2细胞的物理防御屏障的完整性。同样,在许多体内研究中也得到了印证,如槲皮素和维生素E联合使用可以显著上调老年肉鸡十二指肠、空肠和回肠上皮闭合蛋白-1(claudin-1)、occludin和ZO-1的mRNA表达[21];大豆异黄酮可以上调仔猪空肠上皮ZO-1和occludin的mRNA表达[22];蒲公英黄酮可以提高鲳鲹幼鱼肠道上皮ZO-1、occludin的mRNA表达[23];蜂巢黄酮可以显著上调鹅肠道上皮紧密连接蛋白ZO-1和ZO-2的表达[24]。由此可见,黄酮类化合物可以通过促进紧密连接蛋白的表达来增强胃肠道物理防御功能,从而防止肠腔内有害物质渗透到周围组织中,发挥机械屏障作用。细胞间的紧密连接结构具有高度的动态稳定性,其通透性决定着整个肠上皮细胞的屏障功能,而上皮细胞单层的跨上皮电阻(TER)是反映上皮通透性的直接指标。Pomothy等[25]研究发现,添加20 μmol/L槲皮素可以显著提高脱氧雪腐镰刀菌烯醇(DON)诱导的猪肠上皮细胞IPEC-J2的TER值,保持单层细胞的完整性,降低细胞通透性,从而提高肠上皮细胞的屏障防御功能。综上可知,黄酮类化合物可以通过调节黏液层结构、促进细胞间紧密连接蛋白表达以及降低上皮细胞通透性,从而维护肠道的物理防御功能。

2.2.2 对胃肠道微生物组生态防御屏障的调控

动物胃肠道内栖居着数以万亿的共生微生物,构成了一个极其复杂的微生态体系。这些微生物大多数定植在黏膜层中形成一道微生物屏障,协助黏膜层抵御有害微生物入侵。肠道微生态平衡对于维持动物肠道健康和增强宿主防御机制具有重要作用。近年来的研究显示,黄酮类化合物对于肠道菌群的调控被认为是其发挥生物活性功能的重要机制。黄酮类化合物能够通过调控肠道菌群的多样性、结构和代谢产物,维持胃肠道的微生物生态防御系统稳衡。赵慧颖等[26]研究显示,沙棘黄酮不仅可以提高奶牛瘤胃乙酸浓度及乙酸/丙酸值,降低戊酸浓度,还可以增加瘤胃细菌多样性,提高瘤胃中与苯丙氨酸、酪氨酸和色氨酸生物合成通路相关的代谢物含量,为脂质合成提供更多的前体物,说明沙棘黄酮可以通过影响瘤胃发酵模式、菌群多样性以及相关代谢产物对瘤胃微生态防御产生积极作用。黄酮类化合物还可以通过改变菌群组成结构提高肠道屏障功能,促进胃肠道健康。在鸡上的研究表明,竹叶黄酮可降低肠道厚壁菌门/拟杆菌门值,提高乳杆菌和拟杆菌的相对丰度[27],并上调乳酸杆菌、瘤胃球菌和毛螺菌科等有益微生物的相对丰度,改变肉鸡肠道微生物群落结构和组成[28];辣木叶粗黄酮可以减少雏鸡肠道大肠杆菌的数量,增加乳酸杆菌和双歧杆菌的数量[29]。前人研究发现,乳酸杆菌等有益菌具有改善肠道微生态环境、增强肠道屏障功能的作用。异黄酮是黄酮类化合物的重要亚类之一,它可以提高肠道菌群中双歧杆菌的数量来抑制炎症相关基因的表达,有效保护肠道菌群结构和肠屏障功能[30]。最新研究报道,异黄酮调节肠道菌群的机制可能是通过调节有害细菌的程序性死亡,抑制细菌DNA、RNA和蛋白质的合成,破坏其细胞膜和细胞壁的结构从而抑制细菌的呼吸;更为重要的是,异黄酮还可以通过抑制有害细菌细胞膜和细胞壁的形成从而降低有害细菌生长繁殖速度,调控肠道菌群平衡[31]。也有研究表明,黄酮类化合物还可以通过促进微生物代谢产物的生成来改善肠道微生态环境,维护肠道功能稳态。橙皮素和橘皮素属于黄烷酮类化合物,人长期补充会增加肠道中双歧杆菌和乳酸杆菌的数量和增殖速度,提高短链脂肪酸(SCFA)含量,维持肠道菌群平衡[32]。表没食子儿茶素3-O-(3-O-甲基)没食子酸酯(EGCG3″Me)是茶多酚中最有效的活性成分,属于儿茶素,也是一种黄烷醇类化合物。Cheng等[33]和Zhang等[34]研究发现,EGCG3″Me能促进肠道SCFA的生成,在抑制普雷沃氏菌属、溶组织梭状芽孢杆菌和梭状真杆菌的同时,促进双歧杆菌、乳杆菌/肠球菌等的生长,调节肠道内失衡的微生物菌群,改善肠道菌群平衡,促进肠道生态平衡。

2.2.3 对胃肠道免疫防御屏障的调控

胃肠道作为机体最大的黏膜屏障,在免疫防御中发挥着重要作用。免疫屏障由胃肠道相关免疫细胞及其分泌的细胞因子组成。肠道免疫屏障主要包括肠黏膜表面的淋巴组织、派伊尔氏淋巴集结、固有层淋巴细胞、黏膜上皮内淋巴细胞和分泌型免疫球蛋白A(sIgA)。这道屏障在抵御致病菌入侵、调控炎症和免疫因子表达以及维持肠道正常生理稳态中起着至关重要的作用。目前发现的许多黄酮类化合物已被证明可以调节肠道免疫屏障。如原花青素可以提高小鼠肠道总派伊尔氏淋巴集结和固有层淋巴细胞数量和Th2细胞因子水平,促进黏膜sIgA的分泌以及转运蛋白多聚免疫球蛋白受体(pIgR)的表达,增强肠道免疫屏障[35];葛根素可以提高小鼠结肠固有层细胞中Foxp3+、CD4+细胞和CD103+、CD11c+树突状细胞的比例,降低近端结肠中IL-4和肥大细胞蛋白酶-1(mMCP-1)的基因表达水平,进而修复食物过敏导致的肠道免疫防御系统损伤[36]。近期研究表明,黄酮类化合物可以通过调控细胞因子分泌以维护肠道免疫屏障。在肉鸡上的研究表明,饲粮中添加750 mg/kg黑沙蒿黄酮在显著提高肉仔鸡肠道黏膜sIgA、免疫球蛋白G和免疫球蛋白M含量的同时,还可以提高白细胞介素-2(IL-2)、IL-4含量,降低白细胞介素-6(IL-6)含量以及白细胞介素-1β(IL-1β)的mRNA表达量,增强肉仔鸡肠道免疫防御功能[37]。也有研究发现,黄酮类化合物还能够通过抑制T淋巴细胞,降低促炎因子和趋化因子的活性,调控肠道免疫屏障,促进肠道健康[38]。在仔猪饲粮中添加80 mg/kg柑橘黄酮可以显著增加淋巴细胞的数量,提高抗炎因子白细胞介素-10(IL-10)以及抗氧化蛋白基因核因子E2相关因子2(Nrf2)、抗氧化酶血红素氧合酶1(HO-1)和磷酸酰胺腺嘌呤二核苷酸醌氧化还原酶-1(NQO-1)的mRNA表达量,同时降低核因子-κB(NF-κB)、Toll样受体2(TLR2)和肿瘤坏死因子-α(TNF-α)的mRNA表达量,增强仔猪的肠道免疫防御功能[39]。β-防御素是一种由肠道细胞分泌的内源性小分子抗菌肽,在抗菌和免疫方面发挥重要作用,饲粮添加22 mg/kg沙葱黄酮可以显著提高肉羊小肠中β-防御素-1(sBD-1)和β-防御素-2(sBD-2)基因的表达量,从而增强肉羊肠道非特异性免疫机能,提升肠道免疫防御功能[40]。由此可见,黄酮类化合物可以作用于动物的胃肠道免疫系统,增强相关淋巴组织以及免疫细胞的功能,促进sIgA以及相关炎性因子的分泌,提高动物胃肠道的免疫防御功能。

2.2.4 对胃肠道化学防御屏障的调控

胃肠道分泌的胃酸、胆汁、各种消化酶、溶菌酶、黏多糖、糖蛋白和糖脂等化学物质主要发挥化学防御功能。胃肠道内适宜的pH对于清除病原菌具有重要意义,pH升高会加速病原菌增殖,同时影响消化酶的活性。陈庆菊[39]研究表明,柑橘黄酮可以显著降低仔猪十二指肠的pH,显著提高胃蛋白酶、空肠和回肠脂肪酶以及胰蛋白酶的活性,有助于营养物质的消化吸收,表明黄酮类化合物可以通过降低胃肠道pH以及提高消化酶活性,改善胃肠道健康。林晓春等[41]研究指出,甘草总黄酮可以显著提高胃黏膜黏蛋白和酸性黏蛋白指数,进而发挥对胃黏膜保护作用。大豆异黄酮可以调节肠道消化酶的分泌,但具体机制尚不明确,也有学者认为大豆异黄酮可以促进肠道上皮细胞的生长、营养物质的吸收,进而调节消化酶的分泌,改善肠道健康[42]

2.3 对胃肠道重要生理防御功能动态稳衡的调控

2.3.1 对肠道促炎-抗炎反应稳态平衡的调控

炎症是机体受到外界刺激引起组织损伤而产生的防御反应,是机体自我防御功能的一个重要组成部分。适度的急性肠道炎症反应对于维持肠道防御屏障和机体健康具有重要作用。大量研究表明,黄酮类化合物可以通过多种途径发挥抗炎作用改善动物胃肠道健康,提高生产性能。如辣木黄酮可以提高结肠上皮抗炎因子IL-10表达,并抑制促炎细胞因子IL-1βTNF-α和高迁移率族蛋白B1(HMGB1)的mRNA表达,调控结肠促炎-抗炎平衡,从而发挥对肠道健康的保护作用[43]。木犀草素是一种天然黄酮类化合物,其抗炎作用一部分是通过降低IL-1βIL-2、IL-6、白细胞介素-8(IL-8)、白细胞介素-31(IL-31)、白细胞介素-33(IL-33)和TNF-α等促炎因子以及趋化因子如单核细胞趋化蛋白-1(MCP-1)等的表达发挥作用;不仅如此,还可以提高抗炎因子表达,如IL-10、IL-13[44],调控机体促炎-抗炎平衡。机体内部促炎-抗炎平衡的存在是确保炎症反应能充分发挥防御功能而不至于转变为致病机制的重要生理防御保障机制。也有研究报道,黄酮类化合物可以通过抑制相关炎症信号通路如NF-κB、丝裂原活化蛋白激酶(MAPK)等来减轻促炎因子的产生,保护肠道上皮细胞[45]。如橙皮苷可以显著抑制大鼠肠道半胱氨酸蛋白酶-1(Caspase-1)和核因子-κB抑制因子(IκB)的高表达,减少TNF-α分泌,改善肠道上皮细胞的炎性损伤,保护肠道上皮屏障完整性[46]。在Sun等[47]的研究中,添加250 mg/kg的槲皮素可以减轻由脂多糖(LPS)引起的细胞外信号调节激酶(ERK)、c-Jun氨基末端激酶(JNK)和p38磷酸化,抑制促炎因子和趋化因子产生,表明槲皮素可以通过介导MAPK通路调控LPS诱导的炎症,缓解肉鸡肠道炎症。淫羊藿苷是一种8-异戊烯基黄酮苷类化合物,它可以通过调节MAPK信号通路,减少上皮细胞炎症与氧化应激反应,缓解腹泻引起的仔猪肠上皮屏障功能损伤,维持肠道的完整性[48]。因此,黄酮类化合物可以有效控制肠道内各类促炎因子并与肠道内抗炎因子形成正向动态平衡,维持肠道和机体的内环境稳态。

2.3.2 对胃肠道氧化应激反应的调控

氧化应激是机体在遭受各种有害刺激时,体内产生大量的活性氧(ROS),出现氧化程度超出抗氧化物清除能力,氧化系统和抗氧化系统动态失衡的状态。卢德勋[49]提出,氧化应激和炎症反应通常是动物出现健康问题的2个重要引爆点,其中氧化应激是源头引爆点。黄酮类化合物是良好的外源性抗氧化剂,其发挥抗氧化的机制是黄酮类化合物通过侧链羟基供氢与自由基发生反应进而终止自由基链式反应,其抗氧化活性与所含羟基数量呈正相关,即所含酚羟基数量越多,黄酮类化合物的抗氧化活性越强[50]。木犀草素和蔓越莓原花青素可以减少LPS引起的氧化应激下猪肠上皮细胞IPEC-J2的ROS产生,发挥抗氧化活性保护肠上皮细胞免受氧化应激损伤[51]。机体的抗氧化系统是自我防御系统之一,抗氧化酶活性可以反映机体的氧化应激状态。黄酮类化合物可以通过调节氧化酶与抗氧化酶的活性、清除自由基调控抗氧化系统。占今舜等[52]研究发现,槲皮素可以通过提高山羊瘤胃上皮细胞的过氧化氢酶(CAT)、超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)的活性来提高上皮细胞的总抗氧化能力(T-AOC),缓解LPS诱导的氧化损伤。同时,槲皮素还可以显著抑制LPS诱导的空肠氧化应激,降低ROS、丙二醛(MDA)和8-羟基-2'-脱氧鸟苷(8-OHdG)水平,并提高SOD和GSH-Px活性,缓解LPS造成的空肠氧化应激[47],激活肠道抗氧化防御功能。黄酮类化合物还可以通过调控抗氧化相关信号通路-Nrf2/Kelch样环氧氯丙烷相关蛋白-1(Keap-1)发挥抗氧化防御功能来减轻氧化应激,改善肠道健康。研究发现,葛根素可以显著促进敌草快诱导仔猪空肠黏膜中Nrf2、HO-1、谷氨酸半胱氨酸连接酶催化亚基(GCLc)和谷氨酰半胱氨酸连接酶调节亚基抗体(GCLm)的蛋白表达,通过调节Nrf2信号通路缓解仔猪空肠氧化应激[53]。作为一种广泛存在于蔬菜和水果中的黄酮类化合物槲皮素,它可以提高Nrf2水平和促进其移位,并上调核因子E2相关因子1(Nrf1)下游基因(HO-1、NQO1和SOD)表达,通过调节Nrf2信号通路减轻肉鸡肠道氧化应激损伤[52]。多项研究证实,木犀草素的抗氧化机制与下调ROS水平、调控Nrf2/Keap-1通路有关[44]。综上所述,黄酮类化合物可以通多种途径发挥抗氧化防御功能,如清除自由基、增强抗氧化酶活性以及调节信号通路相关基因的表达来保护机体免受氧化损伤。

3 小结与展望

黄酮类化合物作为具有开发潜力的新型“替抗物”和健康调控产品,其绿色来源、多种生物活性以及对动物生产性能和健康等方面的良性作用成为人们日益关注的热点,被广泛用于医疗、食品、饲料及养殖业中。大量研究已证实,黄酮类化合物可通过改善肠道菌群、维持肠道屏障、缓解肠道炎症和氧化应激不利影响以及促进肠道消化吸收等维持并调控动物的肠道健康。目前关于黄酮类化合物的研究诸多,但由于其种类繁多、结构复杂,大部分研究主要集中于提高动物生长性能、免疫力和改善反刍动物瘤胃发酵性能等方面,其使用剂量和饲喂效果的关系以及生物活性机制目前尚不明确;同时,黄酮类饲用产品的产业化很多工艺技术问题尚待解决,这些方面都制约着黄酮类化合物在动物生产实践中的开发应用。相信随着科技的发展以及不断的探索,科研工作者将会加深其作用机制的研究,如针对信号通路、分子作用靶点等方面的研究,为其合理的开发利用提供新的思路。
[1]
RINNINELLA E, RAOUL P, CINTONI M, et al. What is the healthy gut microbiota composition?A changing ecosystem across age,environment,diet,and diseases[J]. Microorganisms, 2019, 7(1):14.

DOI

[2]
CORRADINI E, FOGLIA P, GIANSANTI P, et al. Flavonoids:chemical properties and analytical methodologies of identification and quantitation in foods and plants[J]. Natural Product Research, 2011, 25(5):469-495.

DOI

[3]
MIAO Z M, ZHAO Y X, CHEN M W, et al. Using flavonoids as a therapeutic intervention against rheumatoid arthritis:the known and unknown[J]. Pharmacological Research-Modern Chinese Medicine, 2022, 3:100014.

[4]
汪海峰, 刘沁源. 黄酮类化合物药理活性及其治疗效果研究新进展[J]. 西南国防医药, 2020, 30(6):593-595.

WANG H F, LIU Q Y. Research progress on pharmacological activity and therapeutic effect of flavonoids[J]. Medical Journal of National Defending Forces in Southwest China, 2020, 30(6):593-595. (in Chinese)

[5]
CAMILLERI M, MADSEN K, SPILLER R, et al. Intestinal barrier function in health and gastrointestinal disease[J]. Neurogastroenterology & Motility, 2012, 24(6):503-512.

[6]
HARHAJ N S, ANTONETTI D A. Regulation of tight junctions and loss of barrier function in pathophysiology[J]. The International Journal of Biochemistry & Cell Biology, 2004, 36(7):1206-1237.

DOI

[7]
PANIAGUA M, CRESPO J F, ARÍS A, et al. Supplementing Citrus aurantium flavonoid extract in high-fat finishing diets improves animal behavior and rumen health and modifies rumen and duodenum epithelium gene expression in Holstein bulls[J]. Animals:an Open Access Journal from MDPI, 2022, 12(15):1972.

[8]
WANG B, YANG C T, DIAO Q Y, et al. The influence of mulberry leaf flavonoids and Candida tropicalis on antioxidant function and gastrointestinal development of preweaning calves challenged with Escherichia coli O141:K99[J]. Journal of Dairy Science, 2018, 101(7):6098-6108.

DOI

[9]
包学太, 黎育颖, 田军权, 等. 小檗碱齐墩果酸盐对仔猪生长性能、血清生化指标和肠道健康的影响[J]. 动物营养学报, 2022, 34(3):1495-1507.

DOI

BAO X T, LI Y Y, TIAN J Q, et al. Effects of berberine-oleanolate on growth performance,serum biochemical indices and intestinal health of piglets[J]. Chinese Journal of Animal Nutrition, 2022, 34(3):1495-1507. (in Chinese)

[10]
XUE F G, WAN G, XIAO Y S, et al. Growth performances,gastrointestinal epithelium and bacteria responses of yellow-feathered chickens to kudzu-leaf flavonoids supplement[J]. AMB Express, 2021, 11(1):125.

DOI

[11]
YOU T, TANG J Y, YIN S G, et al. Effect of dietary licorice flavonoids powder on performance,intestinal immunity and health of weaned piglets[J/OL]. Journal of Animal Physiology and Animal Nutrition.(2022-03-05) [2022-06-15]. https://onlinelibrary.wiley.com/doi/10.1111/jpn.13694DOI:10.1111/jpn.13694.

DOI

[12]
LI Y P, JIANG X R, WEI Z X, et al. Effects of soybean isoflavones on the growth performance, intestinal morphology and antioxidative properties in pigs[J]. Animal, 2020, 14(11):2262-2270.

DOI

[13]
YUAN D X, WANG J, XIAO D F, et al. Eucommia ulmoides flavones as potential alternatives to antibiotic growth promoters in a low-protein diet improve growth performance and intestinal health in weaning piglets[J]. Animals:an Open Access Journal from MDPI, 2020, 10(11):1998.

[14]
ZUCCO F. Freshly isolated cells and cell lines from the intestine as an in vitro model for toxicological studies[J]. Toxicology in Vitro, 1993, 7(4):397-402.

[15]
DESAI M S, SEEKATZ A M, KOROPATKIN N M, et al. A dietary fiber-deprived gut microbiota degrades the colonic mucus barrier and enhances pathogen susceptibility[J]. Cell, 2016, 167(5):1339-1353.e21.

DOI PMID

[16]
李娇娇. 异黄酮调节肠道屏障功能与蠕动功能的作用机制[D].博士学位论文. 南昌: 南昌大学, 2021.

LI J J. The mechanism of isoflavones in regulating intestinal barrier function and peristaltic function[D].Ph.D. Thesis. Nanchang: Nanchang University, 2021. (in Chinese)

[17]
黄则华, 曾悦, 黄春兰. 肠道菌群对黏蛋白2的影响及其作用机制[J]. 胃肠病学, 2019, 24(2):111-114.

HUANG Z H, ZENG Y, HUANG C L. Effect and mechanism of intestinal flora on mucin 2[J]. Chinese Journal of Gastroenterology, 2019, 24(2):111-114. (in Chinese)

[18]
PIERRE J F, HENEGHAN A F, FELICIANO R P, et al. Cranberry proanthocyanidins improve the gut mucous layer morphology and function in mice receiving elemental enteral nutrition[J]. Journal of Parenteral and Enteral Nutrition, 2013, 37(3):401-409.

DOI PMID

[19]
ULLUWISHEWA D, ANDERSON R C, MCNABB W C, et al. Regulation of tight junction permeability by intestinal bacteria and dietary components[J]. The Journal of Nutrition, 2011, 141(5):769-776.

DOI

[20]
MAYANGSARI Y, SUGIMACHI N, XU W X, et al. 3,5,7,3',4'-pentamethoxyflavone enhances the barrier function through transcriptional regulation of the tight junction in human intestinal Caco-2 cells[J]. Journal of Agricultural and Food Chemistry, 2021, 69(35):10174-10183.

DOI

[21]
AMEVOR F K, CUI Z F, DU X X, et al. Supplementation of dietary quercetin and vitamin E promotes the intestinal structure and immune barrier integrity in aged breeder Hens[J]. Frontiers in Immunology, 2022, 13:860889.

[22]
ZHU C, WU Y P, JIANG Z Y, et al. Dietary soy isoflavone attenuated growth performance and intestinal barrier functions in weaned piglets challenged with lipopolysaccharide[J]. International Immunopharmacology, 2015, 28(1):288-294.

DOI PMID

[23]
TAN X H, SUN Z Z, ZHOU C P, et al. Effects of dietary dandelion extract on intestinal morphology, antioxidant status,immune function and physical barrier function of juvenile golden pompano Trachinotus ovatus[J]. Fish & Shellfish Immunology, 2018, 73:197-206.

[24]
HE C X, WU H D, LV Y N, et al. Gastrointestinal development and microbiota responses of geese to honeycomb flavonoids supplementation[J]. Frontiers in Veterinary Science, 2021, 8:739237.

[25]
POMOTHY J M, GATT K, JERZSELE Á, et al. The impact of quercetin on a porcine intestinal epithelial cell line exposed to deoxynivalenol[J]. Acta Veterinaria Hungarica, 2021, 68(4):380-386.

DOI PMID

[26]
赵慧颖, 余诗强, 贺李莹, 等. 沙棘黄酮对泌乳中期荷斯坦奶牛瘤胃发酵参数、细菌菌群结构及代谢产物的影响[J]. 动物营养学报, 2022, 34(9):5809-5823.

DOI

ZHAO H Y, YU S Q, HE L Y, et al. Effects of seabuckthorn flavonoids on rumen fermentation parameters,rumen microorganism structure and metabolites in mid-lactation Holstein dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5809-5823. (in Chinese)

[27]
CAO G T, YU Y, WANG H X, et al. Effects of oral administration of bamboo (Dendrocalamus membranaceus) leaf flavonoids on the antioxidant capacity,caecal microbiota,and serum metabolome of Gallus gallus domesticus[J]. Frontiers in Nutrition, 2022, 9:848532.

[28]
SHU G, KONG F L, XU D, et al. Bamboo leaf flavone changed the community of cecum microbiota and improved the immune function in broilers[J]. Scientific Reports, 2020, 10(1):12324.

DOI PMID

[29]
唐子婷, 金超, 陈云, 等. 辣木叶粗黄酮对天府肉雏鸡生长、免疫、肠道菌群及抗氧化功能的影响[J]. 饲料工业, 2022, 43(1):39-44.

TANG Z T, JIN C, CHEN Y, et al. Effects of Moringa oleifera leaf flavonoid on growth performance,immune function,intestinal microflora and antioxidant function of Tianfu broiler chickens[J]. Feed Industry, 2022, 43(1):39-44. (in Chinese)

[30]
MONTEIRO N E S, QUEIRÓS L D, LOPES D B, et al. Impact of microbiota on the use and effects of isoflavones in the relief of climacteric symptoms in menopausal women-a review[J]. Journal of Functional Foods, 2018, 41:100-111.

DOI

[31]
闫亚美, 冯丹萍, 陈晓燕, 等. 黑果枸杞花色苷的肥胖干预作用研究进展[J]. 食品科学技术学报, 2020, 38(4):21-26.

YAN Y M, FENG D P, CHEN X Y, et al. Review of obesity intervention of anthocyanins from Lycium ruthenicum Murr[J]. Journal of Food Science and Technology, 2020, 38(4):21-26. (in Chinese)

[32]
LIMA A C D, CECATTI C, FIDÉLIX M P, et al. Effect of daily consumption of orange juice on the levels of blood glucose,lipids,and gut microbiota metabolites:controlled clinical trials[J]. Journal of Medicinal Food, 2019, 22(2):202-210.

DOI

[33]
CHENG M, ZHANG X, MIAO Y J, et al. The modulatory effect of (-)-epigallocatechin 3-O-(3-O-methyl) gallate (EGCG3″Me) on intestinal microbiota of high fat diet-induced obesity mice model[J]. Food Research International, 2017, 92:9-16.

DOI PMID

[34]
ZHANG X, CHEN Y H, ZHU J Y, et al. Metagenomics analysis of gut microbiota in a high fat diet-induced obesity mouse model fed with (-)-epigallocatechin 3-O-(3-O-methyl) gallate (EGCG3″me)[J]. Molecular Nutrition & Food Research, 2018, 62(13):e1800274.

[35]
PIERRE J F, HENEGHAN A F, FELICIANO R P, et al. Cranberry proanthocyanidins improve intestinal sIgA during elemental enteral nutrition[J]. Journal of Parenteral and Enteral Nutrition, 2014, 38(1):107-114.

DOI PMID

[36]
YAMAMOTO T, MATSUNAMI E, KOMORI K, et al. The isoflavone puerarin induces Foxp3+ regulatory T cells by augmenting retinoic acid production, thereby inducing mucosal immune tolerance in a murine food allergy model[J]. Biochemical and Biophysical Research Communications, 2019, 516(3):626-631.

DOI

[37]
郭燕菲, 郭文亮, 石璐璐, 等. 黑沙蒿黄酮对肉仔鸡肠道免疫功能的影响[J]. 饲料研究, 2021, 44(19):45-50.

GUO Y F, GUO W L, SHI L L, et al. Effect of Artemisia ordosica flavonoids on intestinal immune function of broilers[J]. Feed Research, 2021, 44(19):45-50. (in Chinese)

[38]
KUSUNOKI Y, IKARASHI N, HAYAKAWA Y, et al. Hepatic early inflammation induces downregulation of hepatic cytochrome P450 expression and metabolic activity in the dextran sulfate sodium-induced murine colitis[J]. European Journal of Pharmaceutical Sciences, 2014, 54:17-27.

DOI PMID

[39]
陈庆菊. 柑橘黄酮对断奶仔猪生长性能、抗氧化功能和肠道健康的影响研究[D].硕士学位论文. 重庆: 西南大学, 2020.

CHEN Q J. Study on the effect of citrus flavonoids on growth performance,antioxidant function and intestinal health of weaned piglets[D].Master's Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[40]
陈圣阳. 沙葱多糖对肉羊生产性能及其肠道免疫功能的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2018.

CHEN S Y. Effect of polysaccharide from Allium mongolicum Regel on production performance and intestinal immune function in meat sheep[D].Master's Thesis. Hohhot: Inner Mongolia Agricultural University, 2018. (in Chinese)

[41]
林晓春, 陈育尧, 白殊同, 等. 甘草总黄酮对慢性浅表性胃炎大鼠胃粘膜损伤的保护作用[J]. 南方医科大学学报, 2013, 33(2):299-304.

LIN X C, CHEN Y Y, BAI S T, et al. Protective effect of licoflavone on gastric mucosa in rats with chronic superficial gastritis[J]. Journal of Southern Medical University, 2013, 33(2):299-304. (in Chinese)

[42]
叶继丹, 陈学豪. 大豆黄素对美洲鳗生长及肝、肠组织中几种代谢酶活性的影响[J]. 集美大学学报(自然科学版), 2008, 13(1):1-6.

YE J D, CHEN X H. Effects of dietary daidzein on growth and activities of digestive enzyme,superoxide dismutase and acid phosphatase in American eel,Anguilla rostrata[J]. Journal of Jimei University (Natural Science), 2008, 13(1):1-6. (in Chinese)

[43]
彭伟龙, HUSIEN H M, 伯若楠, 等. 辣木叶总黄酮对小鼠溃疡性结肠炎防治作用的研究[J]. 中国畜牧兽医, 2022, 49(10):4042-4051.

PENG W L, HUSIEN H M, BAI R N, et al. Preventive and therapeutic effects of Moringa oleifera leaf flavonoids on ulcerative colitis in mice[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(10):4042-4051. (in Chinese)

[44]
韩宁馨, 孙雅丽, 盛帅, 等. 木犀草素对氧化应激和炎症的调控机制[J]. 动物营养学报, 2022, 34(5):2856-2861.

DOI

HAN N X, SUN Y L, SHENG S, et al. Regulatory mechanism of luteolin on oxidative stress and inflammation[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):2856-2861. (in Chinese)

DOI

[45]
王丽雪, 解玉怀, 张桂国. 植物源性抗氧化剂的应用及其作用机制[J]. 动物营养学报, 2017, 29(5):1481-1488.

WANG L X, XIE Y H, ZHANG G G, et al. Application of phytogenic antioxidants and its mechanisms[J]. Chinese journal of animal nutrition, 2017, 29(5):1481-1488.

[46]
钟佳, 卞艺斐, 刘萍, 等. 橙皮苷抑制LPS诱导的肠上皮细胞炎性损伤及其机制研究[J]. 中国兽医杂志, 2022, 58(1):66-69,74.

ZHONG J, BIAN Y F, LIU P, et al. Effect and mechanism of hesperidin on lipopolysaccharide-induced inflammatory injury of intestinal epithelial cells[J]. Chinese Journal of Veterinary Medicine, 2022, 58(1):66-69,74. (in Chinese)

[47]
SUN L, XU G Q, DONG Y Y Y, et al. Quercetin protects against lipopolysaccharide-induced intestinal oxidative stress in broiler chickens through activation of Nrf2 pathway[J]. Molecules, 2020, 25(5):1053.

DOI

[48]
XIONG W, HUANG J, LI X Y, et al. Icariin and its phosphorylated derivatives alleviate intestinal epithelial barrier disruption caused by enterotoxigenic Escherichia coli through modulate p38 MAPK in vivo and in vitro[J]. FASEB Journal, 2020, 34(1):1783-1801.

DOI

[49]
卢德勋. 动物营养学科发展在战略方向上的重大突破:构建动物健康营养理论和技术体系及其实际应用[J]. 动物营养学报, 2021, 33(1):1-12.

DOI

LU D X. A Major breakthrough in development of animal nutrition in strategic direction:building an animal health and nutrition theory and technology system and its application[J]. Chinese Journal of Animal Nutrition, 2021, 33(1):1-12. (in Chinese)

[50]
LI H D, YU J Z. Optimal enzyme-assisted ethanol extraction of flavonoids from Broccoli by RSM and research on antioxidant effect[J]. Chemical and Biomolecular Engineering, 2016, 1(1):12-20.

[51]
KOVÁCS D, KARANCSI Z, FARKAS O, et al. Antioxidant activity of flavonoids in LPS-treated IPEC-J2 porcine intestinal epithelial cells and their antibacterial effect against bacteria of swine origin[J]. Antioxidants, 2020, 9(12):1267.

DOI

[52]
占今舜, 霍俊宏, 詹康, 等. 槲皮素对脂多糖刺激下山羊瘤胃上皮细胞抗氧化和抗炎的影响[J]. 草业科学, 2021, 38(7):1393-1401.

ZHAN J S, HUO J H, ZHAN K, et al. Effects of quercetin on antioxidant and anti-inflammatory properties of goat rumen epithelial cells stimulated with lipopolysaccharide[J]. Pratacultural Science, 2021, 38(7):1393-1401. (in Chinese)

[53]
LI M, YUAN D X, LIU Y H, et al. Dietary puerarin supplementation alleviates oxidative stress in the small intestines of diquat-challenged piglets[J]. Animals, 2020, 10(4):631.

DOI

文章导航

/