研究论文

褪黑素对青鱼生长、非特异性免疫、抗氧化能力、肠道消化酶活性以及肝脏胰岛素样生长因子Ⅰ和热休克蛋白70 mRNA表达的影响

  • 殷淦 ,
  • 王天 ,
  • 牛玉涵 ,
  • 杨梅 ,
  • 曹梦慧 ,
  • 叶金云 ,
  • 明建华 , *
展开
  • 湖州师范学院生命科学学院,水生动物繁育与营养国家地方联合工程实验室,浙江省水生生物资源养护与开发技术研究重点实验室,湖州 313000
*明建华,教授,硕士生导师,E-mail:

殷 淦(2001—),男,江苏盐城人,本科生,水产养殖学专业。E-mail:

收稿日期: 2022-08-24

  网络出版日期: 2023-03-16

基金资助

浙江省基础公益研究计划项目(LGN20C190006)

湖州市公益性技术应用重点项目(2020GZ09)

2021年国家级大学生创新创业训练计划项目(202110347043)

国家现代农业产业技术体系资助(CARS-45)

Effects of Melatonin on Growth, Non-Specific Immunity, Antioxidant Capacity, Intestinal Digestive Enzyme Activities and mRNA Expression of Insulin-Like Growth Factor-Ⅰ and Heat Shock Protein 70 in Liver of Black Carp (Mylopharyngodon piceus)

  • YIN Gan ,
  • WANG Tian ,
  • NIU Yuhan ,
  • YANG Mei ,
  • CAO Menghui ,
  • YE Jinyun ,
  • MING Jianhua , *
Expand
  • Zhejiang Provincial Key Laboratory of Aquatic Resources Conservation and Development, National-Local Joint Engineering Laboratory of Aquatic Animal Genetic Breeding and Nutrition, College of Life Science, Huzhou University, Huzhou 313000, China
*professor, E-mail:

Received date: 2022-08-24

  Online published: 2023-03-16

摘要

本研究旨在探讨饲料中添加褪黑素对青鱼生长、非特异性免疫、抗氧化能力、肠道消化酶活性以及肝脏胰岛素样生长因子Ⅰ(IGF-Ⅰ)和热休克蛋白70(HSP70)mRNA表达的影响。试验选取525尾初始体质量为(6.44±0.17) g的青鱼幼鱼,随机分成5个组,分别饲喂在基础饲料中添加0(对照组)、5、10、15和20 mg/kg褪黑素的5种饲料,每组3个重复,每个重复35尾鱼。试验期8周。结果表明:1)与对照组相比,饲料中添加10~20 mg/kg褪黑素可显著提高青鱼增重率(WGR)和特定生长率(SGR)(P<0.05),显著降低饲料系数(FCR)(P<0.05),但对存活率、肝体指数、内脏指数和肥满度无显著影响(P>0.05);通过折线模型推测,当饲料中褪黑素添加量为9.28 mg/kg时,青鱼幼鱼将获得最大WGR。2)与对照组相比,饲料中添加10和15 mg/kg褪黑素可显著提高青鱼血清总蛋白(TP)和补体3(C3)含量以及溶菌酶(LSZ)和碱性磷酸酶(ALP)活性(P<0.05),并显著降低青鱼感染嗜水气单胞菌后的累积死亡率(P<0.05);而饲料中添加15 mg/kg褪黑素则可显著提高血清补体4(C4)含量(P<0.05),显著降低血清谷丙转氨酶(ALT)活性(P<0.05);饲料中添加褪黑素对血清谷草转氨酶(AST)活性无显著影响(P>0.05)。3)与对照组相比,饲料中添加10和15 mg/kg褪黑素可显著提高青鱼肝脏超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GPx)活性、还原型谷胱甘肽(GSH)含量以及总抗氧化能力(T-AOC)(P<0.05),且饲料中添加10 mg/kg褪黑素还可显著提高肝脏过氧化氢酶(CAT)活性(P<0.05),但饲料中添加褪黑素对肝脏谷胱甘肽还原酶(GR)活性无显著影响(P>0.05)。4)与对照组相比,饲料中添加10 mg/kg褪黑素可显著提高青鱼肠道胰蛋白酶活性(P<0.05),饲料中添加褪黑素对肠道淀粉酶和脂肪酶活性无显著影响(P>0.05)。5)青鱼肝脏IGF-Ⅰ和HSP70 mRNA表达水平随饲料中褪黑素添加量的增加而呈先升高后降低的变化趋势,当饲料中褪黑素添加量为10 mg/kg时,这2种基因的mRNA表达水平达到最高。由此可见,当饲料中添加适量褪黑素时可促进青鱼幼鱼的生长,提高其非特异性免疫力和抗氧化能力,并增强肠道胰蛋白酶活性;当饲料中褪黑素添加量为9.28 mg/kg时,体质量为6.41~34.83 g的青鱼幼鱼可获得最大WGR。

本文引用格式

殷淦 , 王天 , 牛玉涵 , 杨梅 , 曹梦慧 , 叶金云 , 明建华 . 褪黑素对青鱼生长、非特异性免疫、抗氧化能力、肠道消化酶活性以及肝脏胰岛素样生长因子Ⅰ和热休克蛋白70 mRNA表达的影响[J]. 动物营养学报, 2023 , 35(3) : 1926 -1937 . DOI: 10.12418/CJAN2023.180

Abstract

This study was conducted to investigate the effects of dietary melatonin on growth, non-specific immunity, antioxidant capacity, intestinal digestive enzyme activities, and mRNA expression of insulin-like growth factor-Ⅰ (IGF-Ⅰ) and heat shock protein 70 (HSP70) in liver of black carp (Mylopharyngodon piceus). A total of 525 juvenile black carp with an initial body weight of (6.44±0.17) g were randomly divided into 5 groups with 3 replicates per group and 35 fish per replicate. The fish in 5 groups were fed basal diets supplemented with 0 (control group), 5, 10, 15 and 20 mg/kg melatonin, respectively. The experiment lasted for 8 weeks. The results showed as follows: 1) compared with the control group, dietary 10 to 20 mg/kg melatonin significantly increased the weight gain rate (WGR) and specific growth rate (SGR) (P<0.05), and significantly decreased the feed conversion ratio (FCR) (P<0.05), but had no significant effects on the survival rate, hepatosomatic index, visceral index and condition factor (P>0.05). Based on the broken line model, it was estimated that when the dietary melatonin level was 9.28 mg/kg, the juvenile black carp got the best WGR. 2) Compared with the control group, dietary 10 and 15 mg/kg melatonin significantly increased the contents of total protein (TP) and complement 3 (C3) and the activities of lysozyme (LSZ) and alkaline phosphatase (ALP) in serum of black carp (P<0.05), and significantly decreased the cumulative mortality after infection with Aeromonas hydrophila (P<0.05). Dietary 15 mg/kg melatonin significantly increased the serum complement 4 (C4) content (P<0.05), and significantly decreased the serum alanine aminotransferase (ALT) activity (P<0.05). Dietary melatonin had no significant effects on serum aspartate aminotransferase (AST) activity (P>0.05). 3) Compared with the control group, dietary 10 and 15 mg/kg melatonin significantly increased the activities of superoxide dismutase (SOD) and glutathione peroxidase (GPx), the reduced glutathione (GSH) content and the total antioxidant capacity (T-AOC) in liver of black carp (P<0.05). In addition, dietary 10 mg/kg melatonin significantly increased the catalase (CAT) activity in liver (P<0.05), but dietary melatonin had no significant effects on the glutathione reductase (GR) activity in liver (P>0.05). 4) Compared with the control group, dietary 10 mg/kg melatonin significantly increased the intestinal trypsin activity (P<0.05), but dietary melatonin had no significant effects on the intestinal amylase and lipase activities (P>0.05). 5) The mRNA expression levels of IGF-Ⅰ and HSP70 in liver of black carp were firstly increased and then decreased with the dietary melatonin supplemental level increasing, and the mRNA expression levels of these two genes reached the highest level when the dietary melatonin supplemental level was 10 mg/kg. In conclusion, dietary supplementation with appropriate amount of melatonin can promote the growth of juvenile black carp, improve their non-specific immunity and antioxidant capacity, and enhance the activity of intestinal trypsin. When the dietary melatonin supplemental level is 9.28 mg/kg, the maximum WGR is obtained for juvenile black carp with a body weight of 6.41 to 34.83 g.

在集约化水产养殖中,由于养殖密度过高、水质恶化、病原侵袭以及消毒剂滥用等不良环境因子的胁迫而使鱼类生长受阻,免疫抑制,甚至引起死亡[1-2]。为此,养殖户不得不在饲养过程中使用抗生素、激素等药物来防治鱼病。然而,长此以往不仅大大提高了养殖成本,也导致细菌的耐药性、药物残留以及食品安全等问题。因此,筛选高效绿色的渔用饲料添加剂,以增强鱼体的免疫力、抗氧化和抗应激能力等已成为目前研究的热点。
褪黑素主要是由动物脑松果体分泌的一种吲哚类内分泌激素[3],由色氨酸转化而成,在包括硬骨鱼类在内的动物体中广泛存在[4]。褪黑素可作用于动物机体的器官、组织和细胞,具有调节生物节律、改善睡眠[5]、抗氧化应激[6-7]和提高免疫力[8]等多种生物学功能。近年来,褪黑素在陆生动物中的研究应用较广泛。雷晓玉等[9]利用注射外源性褪黑素研究其对蛋鸡产蛋率的影响,发现利用外源性褪黑素的蛋鸡在产蛋高峰期产蛋量有显著的提高。唐春祥[10]对猪注射外源性褪黑素,结果表明显著提高了猪的采食量、体增重、饲料报酬以及饲粮蛋白质和能量的消化率,且降低了肌肉脂肪含量。高伟星等[6]研究表明,荷斯坦奶牛饲喂添加褪黑素饲料可显著提升乳脂率、乳糖率与产奶量,同时提高生鲜乳的抗氧化性能。周爱民等[11]通过测定小鼠腹腔巨噬细胞吞噬率,表明褪黑素可以显著增强缺陷小鼠的非特异性免疫力。Reiter等[12]研究发现,生理剂量的褪黑素能使脑中的谷胱甘肽过氧化物酶(glutathion peroxidase,GPx)活性增强,促使谷胱甘肽(GSH)大量生成,从而提高了机体对过氧化物的还原,降低了活性氧(reactive oxygen species,ROS)自由基对机体的损伤。目前,褪黑素在水产动物中的相关研究还很少。据报道,金鱼(Carassius auratus)注射外源性褪黑素,可促进其生长[13],提高免疫力[14];还可抑制高温引起的氧化应激损伤,增强其抗氧化能力[15]。Amri等[16]发现褪黒素可提高金头鲷(Sparus aurata L.)抗氧化酶的活性,降低脂质过氧化物的水平。有鉴于此,开展褪黑素对鱼类生长、免疫、抗氧化能力以及肠道消化酶活性等方面的研究很有必要。
青鱼(Mylopharyngodon piceus)是我国主养的“四大家鱼”之一,其肉质细嫩,味道鲜美,生长快,产量高。据《2022中国渔业统计年鉴》报道,我国青鱼养殖年产量为71.66万t,是江浙一带主养的水产养殖品种。青鱼是一种低等变温脊椎动物,容易受环境温度、养殖密度、病原侵袭及药物滥用等不良因子的影响[1],常常导致大面积的暴发性死亡。因此,本试验以青鱼为研究对象,探讨饲料中添加不同剂量的褪黑素对青鱼生长、非特异性免疫、抗氧化能力、肠道消化酶活性以及肝脏胰岛素样生长因子-Ⅰ(insulin-like growth factor-Ⅰ,IGF-Ⅰ)和热休克蛋白70(heat shock protein 70,HSP70)mRNA表达的影响,为褪黑素在青鱼饲料上的合理应用提供参考依据。

1 材料与方法

1.1 饲料制备

以进口鱼粉、豆粕、菜籽粕和棉籽粕为蛋白质源,大豆油为脂肪源,面粉为糖源,同时添加维生素和矿物质预混物配制成基础饲料,基础饲料组成及营养水平见表1。5种试验饲料则是在基础饲料中分别添加0(对照组)、5、10、15和20 mg/kg褪黑素。褪黑素(纯度≥99%)购自美国Sigma公司。
表1 基础饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
鱼粉 Fish meal 12.00
豆粕 Soybean meal 20.00
菜籽粕 Rapeseed meal 20.00
棉籽粕 Cottonseed meal 10.00
米糠 Rice bran 5.50
面粉 Wheat flour 26.80
大豆油 Soybean oil 2.00
氯化胆碱 Choline chloride 0.20
维生素预混料 Vitamin premix1) 0.50
矿物质预混料 Mineral premix2) 0.50
磷酸二氢钙 Ca(H2PO4)2 1.80
沸石粉 Zeolite powder 0.50
食盐 NaCl 0.20
合计 Total 100.00
营养水平 Nutrient levels3)
水分 Moisture 10.08
粗蛋白质 CP 32.53
粗脂肪 EE 5.43
粗灰分 Ash 8.13
总能 GE/(MJ/kg) 17.05

1)维生素预混料为每千克饲料提供 Vitamin premix provided the following per kg of the diet:VA 25 mg,VD3 3 mg,VE 120 mg,VC 800 mg,VK3 12 mg,VB1 20 mg,VB2 16 mg,VB6 20 mg,VB12 0.1 mg,泛酸 pantothenic acid 30 mg,烟酰胺 nicotinamide 120 mg,叶酸 folic acid 5 mg,生物素 biotin 1.2 mg,肌醇 inositol 800 mg。

2)矿物质预混料为每千克饲料提供 Mineral premix provided the following per kg of the diet:MgSO4·7H2O 450 mg,FeSO4·7H2O 200 mg,CuSO4·5H2O 10 mg,ZnSO4·7H2O 120 mg,MnSO4·H2O 20 mg,Na2SeO3 0.04 mg,KI 0.5 mg,CoCl2·6H2O 2 mg。

3)营养水平为实测值。Nutrient levels were measured values.

饲料原料分别粉碎后过80目筛,按照配方准确称量,采用逐级放大法添加褪黑素,充分混合均匀后,依次加入大豆油、水搅拌混匀,然后用双螺杆饲料制粒机挤压成粒径2 mm的颗粒饲料,置于45 ℃烘箱烘干,冷却后用自封袋封装,于-20 ℃保存备用。

1.2 试验设计及饲养管理

青鱼幼鱼购自湖州本地的水产育苗场,在室内养殖池暂养1周后,挑选初始体质量为(6.44±0.17) g、健康的青鱼幼鱼525尾,随机分成5个组,每组3个重复,分别饲养于浙江省水生生物资源养护与开发技术研究重点实验室的15个循环水养殖桶(500 L)中,每桶放养35尾鱼。
5组青鱼分别投喂上述制备的5种试验饲料,每种饲料随机投喂3桶鱼,每天投喂2次(08:00、17:00),每次以达到鱼的表观饱食为宜,并通过空气泵持续充气增氧。试验期8周,养殖期间,光照周期为自然光周期,水温27~30 ℃,溶解氧含量>6 mg/L,pH 7.2~7.6,氨氮含量<0.01 mg/L。

1.3 攻毒试验

饲养试验结束后,每桶选择10尾规格基本一致的青鱼进行攻毒试验,病原菌采用淡水鱼最易感染的嗜水气单胞菌(Aeromonas hydrophila),由浙江省淡水水产研究所提供。根据明建华等[1]所述方法,将嗜水气单胞菌培养至指数生长期后,用无菌生理盐水稀释,使其终浓度为1.2×10⁶ CFU/mL,按每100 g鱼腹腔注射菌液0.8 mL;另外,从对照组每桶中再选6尾青鱼注射相同剂量的生理盐水作为阴性对照。持续观察1周,统计各组青鱼的累积死亡率。

1.4 样品采集

试验期结束后,试验鱼禁食24 h,将每桶鱼称总质量并计数。从每桶中随机选取3尾青鱼放入浓度为100 mg/L的MS-222溶液中进行快速麻醉,经称重和量体长后,从尾静脉采血并在4 ℃冰箱中静置4 h,然后3 500 r/min离心10 min(4 ℃)制备血清,置于-20 ℃冰箱保存备用。
青鱼采血后立即进行解剖,剥离出内脏团和肝脏并称重,取适量肝脏和肠道用于常规生化或分子生物学指标的检测分析,并于-80 ℃超低温冰箱保存。

1.5 指标测定

1.5.1 生长性能指标

青鱼生长性能及累积死亡率的计算参照明建华等[17]的方法,计算公式如下:
增重率(weight gain rate,WGR,%)=100×[(Wt-W0)/W0];
特定生长率(specific growth rate,SGR,%/d)=100×[(lnWt-lnW0)/t];
饲料系数(feed conversion ratio,FCR)=FI/(Wt-W0);
成活率(survival rate,SR,%)=100×(Nt/N0);
肝体指数(hepatosomatic index,HSI,%)=100×(Wh/Wb);
内脏指数(viscerosomatic index,VSI,%)=100×(Wv/Wb);
肥满度(condition factor,CF,g/cm3)=100×(Wb/L3);
累积死亡率(%)=100×(Nd/Ni)。
式中:W0为鱼初始体质量(g);Wt为鱼终末体质量(g);t为饲养天数(d);FI为摄入饲料总干重(g);N0为初始鱼尾数;Nt为终末鱼尾数;Wh为鱼肝脏质量(g);Wv为鱼内脏团质量(g);Wb为鱼体质量(g);L为鱼体长(cm);Nd为攻毒后死亡鱼尾数;Ni为受感染鱼尾数。

1.5.2 血清生化指标、肝脏抗氧化指标和肠道消化酶活性

血清总蛋白(TP)含量和溶菌酶(LSZ)活性采用南京建成生物工程研究所的试剂盒进行测定;血清碱性磷酸酶(ALP)、谷丙转氨酶(ALT)和谷草转氨酶(AST)活性以及补体3(C3)和补体4(C4)含量采用日立7600全自动生化分析仪测定。
肝脏样品与生理盐水按1:9(质量体积比)的比例进行冰浴电动匀浆,然后3 500 r/min离心15 min(4 ℃),取上清液用于分析。按照南京建成生物工程研究所试剂盒说明书,测定该待测液中超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、GPx和谷胱甘肽还原酶(GR)活性,总抗氧化能力(T-AOC)以及还原型谷胱甘肽(GSH)和丙二醛(MDA)含量。
肠道胰蛋白酶、淀粉酶和脂肪酶活性采用南京建成生物工程研究所的试剂盒进行测定。

1.5.3 肝脏IGF-Ⅰ和HSP70 mRNA表达

采用实时荧光定量PCR检测青鱼肝脏中IGF-Ⅰ和HSP70 mRNA的表达水平。利用Primer 5.0软件设计IGF-Ⅰ和HSP70基因及内参基因β-肌动蛋白(β-actin)的特异性引物(表2),该引物由赛默飞世尔科技(中国)有限公司合成。
表2 实时荧光定量PCR引物序列

Table 2 Real-time fluorescent quantitative PCR primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
退火温度
Annealing
temperature/℃
GenBank登录号
GenBank accession No.
胰岛素样生长因子-Ⅰ
IGF-Ⅰ
F:ACGGCACACAGATATCACCA
R:TCACTTGTCTCTCTCAGCCG
59 MW088575
热休克蛋白70
HSP70
F:CTCATGGGTGACACATCTGG
R:AGGTCTGGGTCTGTTTGGTG
60 KY926431
β-肌动蛋白
β-actin
F:CCTTCTTGGGTATGGAGTC
R:GTCAGCAATGCCAGGGTA
62 KP185128
采用RNAiso Plus试剂盒(TaKaRa,大连)提取青鱼肝脏总RNA,随后通过超微量分光光度计(NanoDrop2000,美国)测定其浓度和纯度。利用PrimeScriptTM反转录试剂盒(TaKaRa,大连),按照其操作说明将总RNA反转录合成cDNA,并于-20 ℃保存备用。利用CFX96实时荧光定量PCR检测系统(Bio-Rad,美国),根据SYBR Premix Ex Taq Ⅱ(TaKaRa,大连)试剂盒说明书进行PCR扩增反应。反应体系共20 μL,包括cDNA 1 μL、10 μmol/L的正反引物各0.9 μL、2×SYBR预混液10 μL和二乙基焦碳酸酯(DEPC)H2O 7.2 μL。扩增程序为:95 ℃预变性30 s;然后95 ℃变性5 s,在最佳退火温度(表2)下退火20 s,共40个循环。在各基因与β-actin扩增效率基本一致的条件下,以对照组mRNA的表达水平为基准,通过2-ΔΔCt[18]计算目的基因mRNA的相对表达水平。

1.6 数据统计与分析

试验数据以“平均值±标准差(means±SD)”形式表示,采用SPSS 20.0统计软件进行单因素方差分析(one-way ANOVA),差异显著时,进行Turkey氏多重比较,P<0.05表示差异显著。

2 结果与分析

2.1 褪黑素对青鱼生长性能的影响

表3可知,随着饲料中褪黑素添加量的增加,青鱼WGR和SGR均呈升高的变化趋势,而FCR则呈下降的变化趋势。与对照组相比,饲料中添加10~20 mg/kg褪黑素可显著提高青鱼WGR和SGR(P<0.05),显著降低FCR(P<0.05),但对青鱼SR、HSI、VSI和CF均无显著影响(P>0.05)。
表3 褪黑素对青鱼生长性能的影响

Table 3 Effects of melatonin on growth performance of black carp

项目
Items
饲料中褪黑素添加量 Dietary melatonin levels/(mg/kg)
0 5 10 15 20
初始体质量 IBW/g 6.47±0.24 6.46±0.19 6.45±0.19 6.43±0.19 6.41±0.29
终末体质量 FBW/g 31.59±2.79 33.90±2.35 34.83±2.57 34.53±2.51 34.39±2.76
增重率 WGR/% 387.86±24.86b 424.63±21.32ab 439.85±25.28a 436.69±23.70a 436.06±22.14a
特定生长率 SGR/(%/d) 2.64±0.08b 2.76±0.07ab 2.81±0.08a 2.80±0.08a 2.80±0.07a
饲料系数 FCR 1.88±0.06a 1.71±0.05b 1.54±0.07c 1.57±0.09c 1.55±0.09c
存活率 SR/% 87.50±5.00 89.17±5.20 94.17±3.82 92.50±5.00 93.33±5.20
肝体指数 HSI/% 2.46±0.33 2.25±0.26 2.26±0.26 2.28±0.29 2.29±0.20
内脏指数 VSI/% 12.17±0.52 11.24±0.96 11.55±0.97 11.86±1.03 11.64±0.91
肥满度 CF/(g/cm3) 2.22±0.14 2.11±0.16 2.12±0.19 2.13±0.19 2.14±0.11

同行数据肩标不同字母表示显著差异(P<0.05),而无字母或相同字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with no letter or the same letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 褪黑素在青鱼饲料中的适宜添加量

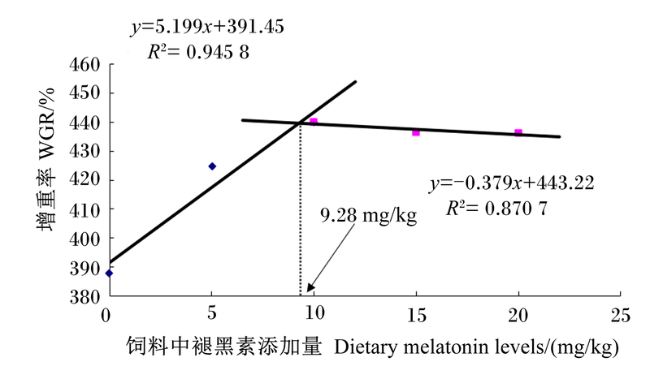
通过折线模型得到WGR与饲料中褪黑素添加量的关系如图1所示,当饲料中褪黑素添加量为9.28 mg/kg时,青鱼幼鱼将获得最大的WGR。
图1 褪黑素对青鱼WGR的影响

Fig.1 Effects of melatonin on WGR of black carp

2.3 褪黑素对青鱼血清生化指标的影响

表4可知,与对照组相比,饲料中添加5、10和15 mg/kg褪黑素可显著提高青鱼血清TP含量(P<0.05),但三者之间的差异不显著(P>0.05);当饲料中褪黑素添加量为10 mg/kg时,青鱼血清LSZ活性显著高于其他各组(P<0.05);饲料中添加10和15 mg/kg褪黑素可显著提高血清ALP活性和C3含量(P<0.05);饲料中添加15 mg/kg褪黑素可显著提高血清C4含量(P<0.05),而显著降低血清ALT活性(P<0.05);饲料中添加褪黑素对血清AST活性无显著影响(P>0.05)。
表4 褪黑素对青鱼血清生化指标的影响

Table 4 Effects of melatonin on serum biochemical indices of black carp

项目
Items
饲料中褪黑素添加量 Dietary melatonin levels/(mg/kg)
0 5 10 15 20
总蛋白 TP/(g/L) 48.57±5.31b 58.36±5.56a 60.37±8.43a 61.07±7.68a 53.36±5.31ab
溶菌酶 LSZ/(U/mL) 161.32±9.47d 171.01±7.23c 202.18±14.10a 192.14±5.92b 186.83±10.45b
碱性磷酸酶 ALP/(U/L) 79.13±15.60b 88.53±18.39ab 104.09±16.58a 107.35±19.91a 98.32±18.54ab
补体3 C3/(g/L) 0.16±0.06b 0.22±0.05ab 0.25±0.06a 0.28±0.05a 0.23±0.08ab
补体4 C4/(g/L) 0.11±0.04b 0.13±0.03ab 0.16±0.05ab 0.18±0.05a 0.15±0.04ab
谷丙转氨酶 ALT/(U/L) 23.89±7.04a 19.77±5.44ab 17.07±4.29ab 16.30±4.83b 17.32±5.31ab
谷草转氨酶 AST/(U/L) 33.67±9.06 28.05±8.27 25.26±5.92 26.93±6.65 27.35±7.41

2.4 褪黑素对青鱼肝脏抗氧化指标的影响

表5可知,与对照组相比,饲料中添加10和15 mg/kg褪黑素可显著提高青鱼肝脏SOD和GPx活性、GSH含量以及T-AOC(P<0.05),而显著降低肝脏MDA含量(P<0.05);饲料中添加10 mg/kg褪黑素还可显著提高肝脏CAT活性(P<0.05);饲料中添加褪黑素对肝脏GR活性无显著影响(P>0.05)。
表5 褪黑素对青鱼肝脏抗氧化指标的影响

Table 5 Effects of melatonin on liver antioxidant indices of black carp

项目
Items
饲料中褪黑素添加量 Dietary melatonin levels/(mg/kg)
0 5 10 15 20
超氧化物歧化酶
SOD/(U/mg prot)
119.02±6.26c 130.25±8.59ab 137.65±6.92a 135.48±6.35a 125.37±7.09bc
过氧化氢酶 CAT/(U/g prot) 17.06±6.25b 22.52±8.86ab 32.74±12.38a 29.24±11.31ab 25.25±9.40ab
谷胱甘肽过氧化物酶
GPx/(U/mg prot)
112.24±20.28c 124.44±14.90bc 165.78±27.39a 159.85±22.21a 146.82±23.93ab
谷胱甘肽还原酶
GR/(U/g prot)
14.05±3.75 12.83±3.58 11.05±3.50 10.47±2.69 13.03±2.50
还原型谷胱甘肽
GSH/(mg/g prot)
11.97±3.68b 17.19±4.22ab 19.04±4.64a 18.68±4.26a 17.73±4.60ab
总抗氧化能力
T-AOC/(U/mg prot)
0.97±0.21b 1.24±0.26ab 1.43±0.31a 1.38±0.32a 1.29±0.31ab
丙二醛 MDA/(nmol/mg prot) 2.55±0.42a 2.27±0.31ab 1.94±0.42b 1.91±0.36b 2.14±0.34ab

2.5 褪黑素对青鱼肠道消化酶活性的影响

表6可知,与对照组相比,饲料中添加10 mg/kg褪黑素可显著提高青鱼肠道胰蛋白酶活性(P<0.05),饲料中添加褪黑素对肠道淀粉酶和脂肪酶活性无显著影响(P>0.05)。
表6 褪黑素对青鱼肠道消化酶活性的影响

Table 6 Effects of melatonin on intestinal digestive enzyme activities of black carp

项目
Items
饲料中褪黑素添加量 Dietary melatonin levels/(mg/kg)
0 5 10 15 20
胰蛋白酶
Trypsin/(U/mg prot)
1 061.06±188.88b 1 627.58±380.41ab 2 071.34±391.41a 2 003.01±434.35ab 1 772.07±365.47ab
淀粉酶
Amylase/(U/mg prot)
768.76±236.49 846.60±210.56 817.17±152.74 827.56±87.94 810.36±156.90
脂肪酶
Lipase/(U/g prot)
206.21±41.17 215.46±46.46 258.73±43.11 224.56±42.98 244.20±34.26

2.6 褪黑素对青鱼肝脏IGF-Ⅰ和HSP70 mRNA表达水平的影响

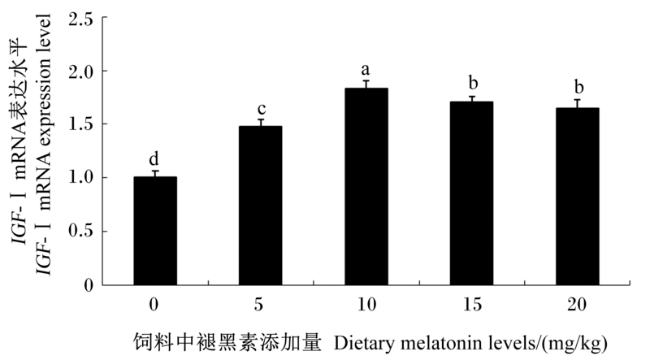
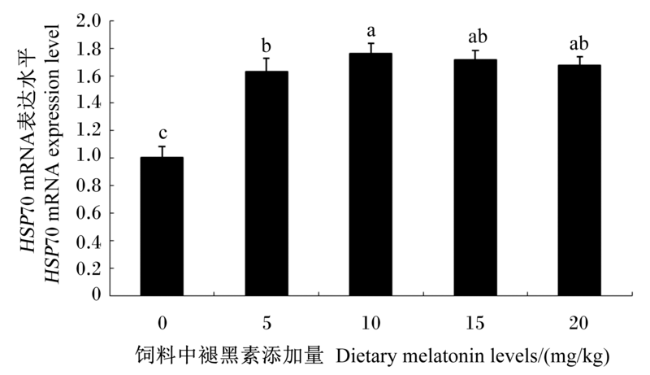
图2图3可知,青鱼肝脏IGF-Ⅰ和HSP70 mRNA表达水平随饲料中褪黑素添加量的增加而呈先升高后降低的变化趋势,当饲料中褪黑素添加量为10 mg/kg时,这2种基因的mRNA表达水平达到最高,其中肝脏IGF-ⅠmRNA表达水平显著高于其他各组(P<0.05),肝脏HSP70 mRNA表达水平显著高于对照组和5 mg/kg褪黑素添加组(P<0.05)。
图2 褪黑素对青鱼肝脏IGF-Ⅰ mRNA表达水平的影响

数据柱标记不同字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of melatonin on IGF-Ⅰ mRNA expression level in liver of black carp

Value columns with different letter superscripts mean significant difference (P<0.05). The same as below.

图3 褪黑素对青鱼肝脏HSP70 mRNA表达水平的影响

Fig.3 Effects of melatonin on HSP70 mRNA expression level in liver of black carp

2.7 褪黑素对青鱼感染嗜水气单胞菌后累积死亡率的影响

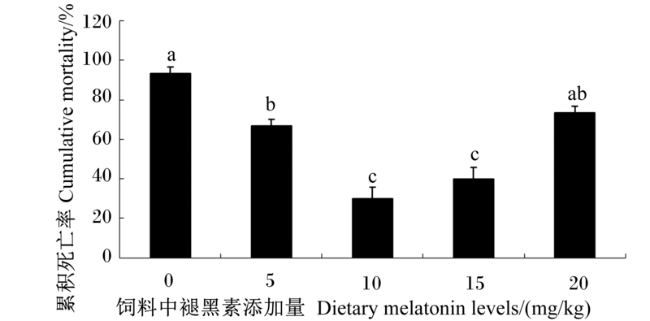
图4可知,随饲料中褪黑素添加量的增加,青鱼感染嗜水气单胞菌后的累积死亡率呈先下降后升高的变化趋势;与对照组相比,饲料中添加10和15 mg/kg褪黑素可显著降低青鱼的累积死亡率(P<0.05),且二者之间无显著差异(P>0.05)。对照组中注射生理盐水的青鱼没有发生死亡现象,可排除试验操作导致的青鱼的死亡。
图4 褪黑素对青鱼感染嗜水气单胞菌后累积死亡率的影响

Fig.4 Effects of melatonin on cumulative mortality of black carp infected with Aeromonas hydrophila

3 讨论

3.1 褪黑素对青鱼生长性能的影响

褪黑素在畜禽中的研究应用相对较多。据报道,荷斯坦奶牛饲喂添加褪黑素的饲粮可显著提高乳中乳脂率、乳糖率和产奶量[6];猪注射外源性褪黑素可显著增加其采食量和体增重,提高饲粮蛋白质和能量的消化率[10]。Osei等[19]报道,饲粮中添加15 mg/kg褪黑素可提高肉鸡的增重率、饲料效率和能量保留率。卢玉发等[20]研究表明,在肉鸡饲粮中添加10 mg/kg褪黑素,也可显著提高肉鸡的平均日增重,并改善饲料转化率。颜佳梦[21]研究表明,饲粮中添加褪黑素2 mg/kg显著提高了第7~14天仔猪的平均日增重,降低了料重比。目前,褪黑素在水产动物中的相关研究报道还较少。De Vlaming[13]研究表明,金鱼腹腔注射褪黑素在短光周期下可促进其生长。大菱鲆(Scophthalmus maximus L.)亲鱼肌肉注射褪黑激素也可增加其体重[22]。本研究中,青鱼饲料中添加10~20 mg/kg褪黑素可显著提高青鱼WGR和SGR,通过折线模型表明饲料中添加9.28 mg/kg褪黑素可促进青鱼的生长。然而,Amri等[16]报道,饲料中添加40 mg/kg褪黑素显著降低了金头鲷 (Sparus aurata L.)的WGR和SGR。这些研究结果的差异可能与褪黑素的添加剂量或鱼种类不同有关,具体原因还有待于进一步研究。

3.2 褪黑素对青鱼非特异性免疫的影响

目前,褪黑素对鱼类非特异性免疫的影响还鲜见报道。周爱民等[11]研究表明,对免疫功能低下或缺陷的小鼠灌胃100~200 μg/kg褪黑素,可增强其特异和非特异性免疫力。卢玉发等[20]研究发现,饲粮中添加10 mg/kg褪黑素可使肉鸡胸腺、法氏囊和脾脏等免疫器官的质量显著增加,从而提高肉鸡的免疫力。颜佳梦[21]研究报道,饲粮中褪黑素添加量为2 mg/kg时,可显著提高断奶仔猪的免疫力,促进抗炎细胞因子的表达,而降低促炎细胞因子的表达。秦莉等[23]研究显示,肝癌小鼠模型皮下注射褪黑素,可提高腹腔巨噬细胞白细胞介素-1β(IL-1β)的诱生水平,但降低了肿瘤坏死因子-α(TNF-α)的水平,表明褪黑素对荷瘤小鼠的巨噬细胞功能具有选择性调节作用。Jung等[14]研究表明,高温会引起金鱼(Carassius auratus)的应激反应,导致免疫力下降,然而金鱼注射褪黑素(5 μg/g体质量)可提高其血浆免疫球蛋白M(IgM)和肝脏LSZ mRNA的表达水平,从而增强其免疫力。本研究中,饲料中添加5~15 mg/kg褪黑素可显著提高青鱼血清TP含量;当饲料中褪黑素添加量为10 mg/kg时,青鱼血清LSZ活性显著高于其他各组;饲料中添加10和15 mg/kg褪黑素可显著提高血清ALP活性和C3含量;饲料中添加15 mg/kg褪黑素可显著提高血清C4含量,而显著降低血清ALT活性。这些表明外源性褪黑素能够增强鱼体的免疫力,可用于预防或治疗一些动物的免疫功能下降[24]

3.3 褪黑素对青鱼抗氧化能力的影响

鱼类与畜禽动物一样,在进化中形成了酶(SOD、CAT、GPx和GR等)和非酶(GSH)的抗氧化防御系统,以清除机体产生的过多自由基,保护其免遭氧化应激损伤[25-26]。褪黑素是一种自由基直接清除剂和间接的抗氧化剂,添加外源性褪黑素可有效改善和治疗与自由基过多引起的氧化应激[12,27],其抗氧化作用主要通过2种途径:一种是直接与自由基结合,淬灭ROS;另一种是减少体内自由基的产生。褪黑素为强羟基自由基(·OH)消除剂,消除能力为维生素E的2倍、GSH的4倍和甘露醇的14倍[28]。颜佳梦[21]研究表明,饲粮中添加2 mg/kg褪黑素可显著提高断奶仔猪血清GPx活性和空肠锰超氧化物歧化酶(Mn-SOD)、铜锌超氧化物歧化酶(Cu/Zn-SOD)的mRNA表达水平,而降低血清MDA含量。周向华等[29]以MDA为指标,考察褪黑素对四氯化碳或氰化钾处理小鼠肝脏或脑组织脂质的保护作用,结果表明,褪黑素可保护脂质和核酸免受过氧化损伤,这可能与其直接清除·OH,提高机体GSH含量以及增强SOD、CAT和GPx的活性有关。褪黑素抗氧化机制的研究认为:褪黑素作用于其受体,通过第二信使的转导,抑制腺苷酸环化酶的活性,减少环磷酸腺苷(cAMP)的生成,从而发挥清除自由基的作用[30]。目前,褪黑素对鱼类抗氧化能力的研究报道还较少。Amri等[16]研究表明,饲料中添加40 mg/kg褪黒素显著提高了金头鲷肝脏SOD活性,降低了脂质过氧化物——硫代巴比妥酸反应物(TBARS)含量。Jung等[15]也报道,金鱼注射褪黑素可抑制高温诱导的氧化应激损伤,并增强其免疫系统的功能。本研究中,饲料中添加10和15 mg/kg褪黑素可显著提高青鱼肝脏SOD和GPx活性、GSH含量以及T-AOC,显著降低肝脏MDA含量;当饲料中褪黑素添加量为10 mg/kg时,还可显著增强肝脏CAT活性,这表明褪黑素可提高青鱼的抗氧化能力。

3.4 褪黑素对青鱼肠道消化酶活性的影响

有关褪黑素对哺乳动物消化生理的研究已有一些报道,Drago等[31]通过对大鼠腹腔注射不同剂量的褪黑素,发现注射低剂量的褪黑素可促进胃肠蠕动,而高剂量的褪黑素则起到抑制作用;Cabeza等[32]研究表明,褪黑素可抑制大鼠胃酸分泌,增加胃黏膜血液的流量,改善黏膜微循环,起到保护胃黏膜的作用。目前褪黑素对鱼类肠道消化酶活性的研究报道还较少。Conde-Sieira等[33]研究表明,虹鳟(Oncorhynchus mykiss)摄食添加褪黑素的饲料,可提高其在非应激状态下肠道蛋白酶和淀粉酶的活性,而对脂肪酶的活性无显著影响。本研究中,饲料中添加10 mg/kg褪黑素可显著提高青鱼肠道胰蛋白酶活性,但饲料中添加褪黑素对肠道淀粉酶和脂肪酶活性无显著影响,其原因还有待于进一步研究。

3.5 褪黑素对青鱼肝脏IGF-Ⅰ和HSP70 mRNA表达的影响

生长激素(GH)/胰岛素样生长因子(IGF)轴是脊椎动物(包括鱼类)调控生长发育的核心[34]。垂体分泌GH并与靶器官(主要是肝脏)上的受体结合,促进肝细胞分泌IGF-Ⅰ,而GH发挥对生长的调控作用,主要是通过介导IGF来实现的[26,35-36]。IGF-Ⅰ主要作用于骨骼、肌肉等靶器官,对胚胎的生长发育和动物出生后的生长发育均起着更直接的作用[37-38]。HSP70是热休克蛋白(HSP)家族的成员之一,具有多种生物学功能,包括分子伴侣、抗氧化、协同免疫和抗细胞凋亡等[39-41],以维持细胞稳态,提高细胞活力并增强对不良环境或病原体的抵抗力[26,41-42]。Deng等[43]研究表明,在人精液的冷冻保护剂中添加0.1 mmol/L褪黑素,可减少冷冻保存精液的氧化损伤并上调其HSP90的表达水平。目前有关褪黑素对鱼类IGF-Ⅰ和HSP70等基因表达方面还鲜见报道。本研究表明,饲料中添加褪黑素10 mg/kg可显著提高青鱼肝脏IGF-Ⅰ和HSP70 mRNA的表达水平,这也与褪黑素可促进青鱼生长和增强其抗应激能力相关。

3.6 褪黑素对青鱼感染嗜水气单胞菌后的保护作用

在集约化水产养殖中,鱼类容易感染嗜水气单胞菌,导致鱼类出血性败血症的暴发性流行,给养殖业者造成巨大的经济损失[44-45]。目前有关褪黑素对鱼类抗嗜水气单胞菌感染的作用还鲜见报道。本研究中,随饲料中褪黑素添加量的增加,青鱼感染嗜水气单胞菌后的累积死亡率呈先下降后升高的变化趋势,饲料中添加10和15 mg/kg褪黑素可显著降低青鱼的累积死亡率。这可能与褪黑素可提高鱼类的免疫力[14]和抗氧化应激能力[15-16]有关,从而增强了青鱼抗病原感染能力。

4 结论

饲料中添加适量褪黑素可促进青鱼生长,提高其非特异性免疫力和抗氧化能力,并增强肠道胰蛋白酶活性,提高肝脏IGF-Ⅰ和HSP70 mRNA的表达水平。在本试验条件下,当饲料中褪黑素添加量为9.28 mg/kg时,体质量为6.41~34.83 g的青鱼幼鱼获得最大WGR。
[1]
明建华, 谢骏, 徐跑, 等. 大黄素、维生素C及其配伍对团头鲂生长、生理生化指标、抗病原感染以及两种HSP70s mRNA表达的影响[J]. 水产学报, 2010, 34(9):1447-1459.

MING J H, XIE J, XU P, et al. Effects of emodin,vitamin C and their combination on growth,physiological and biochemical parameters,disease resistance and two HSP70s mRNA expression of Wuchang bream (Megalobrama amblycephala)[J]. Journal of Fisheries of China, 2010, 34(9):1447-1459. (in Chinese)

[2]
LUSHCHAK V I. Environmentally induced oxidative stress in aquatic animals[J]. Aquatic Toxicology, 2011, 101(1):13-30.

DOI PMID

[3]
ACKERMANN K, STEHLE J H. Melatonin synthesis in the human pineal gland:advantages,implications,and difficulties[J]. Chronobiology International, 2006, 23(1/2):369-379.

DOI

[4]
FALCÓN J, MIGAUD H, MUÑOZ-CUETO J A, et al. Current knowledge on the melatonin system in teleost fish[J]. General and Comparative Endocrinology, 2010, 165(3):469-482.

DOI PMID

[5]
VAN MAANEN A, MEIJER A M, SMITS M G, et al. Classical conditioning for preserving the effects of short melatonin treatment in children with delayed sleep:a pilot study[J]. Nature and Science of Sleep, 2017, 9:67-79.

DOI

[6]
高伟星, 马慧, 杨敏娜, 等. 饲喂过瘤胃褪黑素对荷斯坦奶牛乳中褪黑素与其合成前体和代谢产物含量、褪黑素合成酶活性及生产性能的影响[J]. 动物营养学报, 2022, 34(7):4438-4451.

DOI

GAO W X, MA H, YANG M N, et al. Effects of feeding rumen protected melatonin on contents of melatonin,its synthetic precursors and metabolites,melatonin synthase activity in milk and performance of Holstein dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(7):4438-4451. (in Chinese)

[7]
REITER R J. Melatonin:lowering the high price of free radicals[J]. News in Physiological Sciences, 2000, 15:246-250.

[8]
REITER R J, CALVO J R, KARBOWNIK M, et al. Melatonin and its relation to the immune system and inflammation[J]. Annals of the New York Academy of Sciences, 2000, 917:376-386.

PMID

[9]
雷晓玉, 雷晓峰, 赵晏. 褪黑激素主动免疫对蛋鸡产蛋率的影响[J]. 畜禽业, 2008(4):10-12.

LEI X Y, LEI X F, ZHAO Y. Effects of active immunization against melatonin on laying rate of laying hens[J]. Livestock and Poultry Industry, 2008(4):10-12. (in Chinese)

[10]
唐春祥. 褪黑激素主动免疫对生长猪生产性能和胴体品质的影响[D].硕士学位论文. 雅安: 四川农业大学, 2005.

TANG C X. Effects of active immunization against melatonin on the growth performance and carcass quality of growing pigs[D].Master's Thesis. Ya'an: Sichuan Agricultural University, 2005. (in Chinese)

[11]
周爱民, 袁育康, 范桂香, 等. 褪黑素的免疫调节作用[J]. 西安医科大学学报, 2001, 22(5):422-424.

ZHOU A M, YUAN Y K, FAN G X, et al. The immunomodulatory role of melatonin[J]. Journal of Xi'an Medical University, 2001, 22(5):422-424. (in Chinese)

[12]
REITER R J, TAN D X, MANCHESTER L C, et al. Melatonin reduces oxidant damage and promotes mitochondrial respiration:implications for aging[J]. Annals of the New York Academy of Sciences, 2002, 959(1):238-250.

DOI

[13]
DE VLAMING V. Effects of pinealectomy and melatonin treatment on growth in the goldfish,Carassius auratus[J]. General and Comparative Endocrinology, 1980, 40(2):245-250.

DOI

[14]
JUNG S J, KIM N N, CHOI Y J, et al. Effects of melatonin and green-wavelength LED light on the physiological stress and immunity of goldfish,Carassius auratus,exposed to high water temperature[J]. Fish Physiology and Biochemistry, 2016, 42(5):1335-1346.

DOI

[15]
JUNG S J, CHOI Y J, KIM N N, et al. Effects of melatonin injection or green-wavelength LED light on the antioxidant system in goldfish (Carassius auratus) during thermal stress[J]. Fish & Shellfish Immunology, 2016, 52:157-166.

[16]
AMRI A, KESSABI K, BOURAOUI Z, et al. Effect of melatonin and folic acid supplementation on the growth performance,antioxidant status,and liver histology of the farmed gilthead sea bream (Sparus aurata L.) under standard rearing conditions[J]. Fish Physiology and Biochemistry, 2020, 46(6):2265-2280.

DOI

[17]
明建华, 叶金云, 张易祥, 等. 姜黄素对草鱼生长性能、抗氧化应激能力及核因子E2相关因子2/抗氧化反应元件信号通路相关基因表达的影响[J]. 动物营养学报, 2019, 31(2):809-823.

MING J H, YE J Y, ZHANG Y X, et al. Effects of curcumin on growth performance,oxidative stress resistance and expression of nuclear factor erythroid 2-related factor 2/antioxidant responsive element signaling pathway-related genes in grass carp (Ctenopharyngodon idella)[J]. Chinese Journal of Animal Nutrition, 2019, 31(2):809-823. (in Chinese)

[18]
LIVAK K J, SCHMITTGEN T D. Analysis of relative gene expression data using real-time quantitative PCR and the 2-ΔΔCT method[J]. Methods, 2001, 25(4):402-408.

DOI

[19]
OSEI P, ROBBINS K R, SHIRLEY H V. Effects of exogenous melatonin on growth and energy metabolism of chickens[J]. Nutrition Research, 1989, 9(1):69-81.

DOI

[20]
卢玉发, 廖清华. 褪黑素对肉鸡生长性能及免疫功能的影响[J]. 饲料工业, 2008(13):37-39.

LU Y F, LIAO Q H. Influence of melatonin on growth performance and immune functions of broiler[J]. Feed Industry, 2008(13):37-39. (in Chinese)

[21]
颜佳梦. 褪黑素对断奶仔猪生长性能、免疫功能和抗氧化能力的影响[D].硕士学位论文. 武汉: 华中农业大学, 2019.

YAN J M. Study on effects of melatonin on growth performance and immune function and antioxidant capacity of weaning piglets[D].Master's Thesis. Wuhan: Huazhong Agricultural University, 2019. (in Chinese)

[22]
ALVARIÑO J M R, REBOLLAR P G, OLMEDO M, et al. Effects of melatonin implants on reproduction and growth of turbot broodstock[J]. Aquaculture International, 2001, 9(6):477-487.

DOI

[23]
秦莉, 王西明, 陈娟, 等. 褪黑素对荷瘤小鼠腹腔巨噬细胞分泌的细胞因子的影响[J]. 肿瘤, 2003, 23(2):119-120,154.

QIN L, WANG X M, CHEN J, et al. Assessment of melatonin's ability to regulate cytokine production by peritoneal macrophages[J]. Tumor, 2003, 23(2):119-120,154. (in Chinese)

[24]
RODRÍGUEZ A B, LEA R W. Effect of pinealectomy upon the nonspecific immune response of the ring-dove (Streptopelia risoria)[J]. Journal of Pineal Research, 1994, 16(3):159-166.

PMID

[25]
MARTÍNEZ-ÁLVAREZ R M, MORALES A E, SANZ A. antioxidant defenses in fish:biotic and abiotic factors[J]. Reviews in Fish Biology and Fisheries, 2005, 15(1):75-88.

DOI

[26]
MING J H, YE J Y, ZHANG Y X, et al. Effects of dietary reduced glutathione on growth performance,non-specific immunity,antioxidant capacity and expression levels of IGF-Ⅰ and HSP70 mRNA of grass carp (Ctenopharyngodon idella)[J]. Aquaculture, 2015, 438:39-46.

DOI

[27]
MANCHESTER L C, COTO-MONTES A, BOGA J A, et al. Melatonin:an ancient molecule that makes oxygen metabolically tolerable[J]. Journal of Pineal Research, 2015, 59(4):403-419.

DOI

[28]
SANDYK R. The accelerated aging hypothesis of Parkinson's disease is not supported by the pattern of circadian melatonin secretion[J]. International Journal of Neuroscience, 1997, 90(3/4):271-275.

DOI

[29]
周向华, 李经才. 褪黑素抗自由基作用及其机制[J]. 中国药理学通报, 1999(1):3-5.

ZHOU X H, LI J C. Effect of melatonin on free radicals and its mechanism[J]. Chinese Pharmacological Bulletin, 1999(1):3-5. (in Chinese)

[30]
BORJIGIN J, LI X, SNYDER S H. The pineal gland and melatonin: molecular and pharmacologic regulation[J]. Annual Review of Pharmacology and Toxicology, 1999, 39:53-65.

PMID

[31]
DRAGO F, MACAUDA S, SALEHI S. Small doses of melatonin increase intestinal motility in rats[J]. Digestive Diseases and Sciences, 2002, 47(9):1969-1974.

DOI PMID

[32]
CABEZA J, MOTILVA V, MARTÍN M J, et al. Mechanisms involved in gastric protection of melatonin against oxidant stress by ischemia-reperfusion in rats[J]. Life Sciences, 2001, 68(12):1405-1415.

PMID

[33]
CONDE-SIEIRA M, MUÑOZ J L P, LÓPEZ-PATIÑO M A, et al. Oral administration of melatonin counteracts several of the effects of chronic stress in rainbow trout[J]. Domestic Animal Endocrinology, 2014, 46:26-36.

DOI

[34]
RILEY L G Jr, WALKER A P, DOROUGH C P, et al. Glucose regulates ghrelin neuropeptide Y,and the GH/IGF-Ⅰ axis in the tilapia,Oreochromis mossambicus[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2009, 154(4):541-546.

[35]
PEDROSO F L, DE JESUS-AYSON E G T, CORTADO H H, et al. Changes in mRNA expression of grouper (Epinephelus coioides) growth hormone and insulin-like growth factor Ⅰ in response to nutritional status[J]. General and Comparative Endocrinology, 2006, 145(3):237-246.

DOI

[36]
REINDL K M, SHERIDAN M A. Peripheral regulation of the growth hormone-insulin-like growth factor system in fish and other vertebrates[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2012, 163(3/4):231-245.

[37]
MIURA Y, KATO H, NOGUCHI T. Effect of dietary proteins on insulin-like growth factor-1 (IGF-1) messenger ribonucleic acid content in rat liver[J]. British Journal of Nutrition, 1992, 67(2):257-265.

PMID

[38]
PIERCE A L, BECKMAN B R, SHEARER K D, et al. Effects of ration on somatotropic hormones and growth in coho salmon[J]. Comparative Biochemistry and Physiology Part B:Biochemistry & Molecular Biology, 2001, 128(2):255-264.

DOI

[39]
SØRNSEN J G. KRISTENSEN T N, LOESCHCKE V. The evolutionary and ecological role of heat shock proteins[J]. Ecology Letters, 2003, 6:1025-1037.

DOI

[40]
DAUGAARD M, ROHDE M, JÄÄTTELÄ M. The heat shock protein 70 family:highly homologous proteins with overlapping and distinct functions[J]. FEBS Letters, 2007, 581(19):3702-3710.

DOI

[41]
MING J H, XIE J, XU P, et al. Molecular cloning and expression of two HSP70 genes in the Wuchang bream (Megalobrama amblycephala Yih)[J]. Fish & Shellfish Immunology, 2010, 28(3):407-418.

[42]
FEDER M E, HOFMANN G E. Heat-shock proteins, molecular chaperones,and the stress response:evolutionary and ecological physiology[J]. Annual Review of Physiology, 1999, 61:243-282.

DOI

[43]
DENG S L, SUN T C, YU K, et al. Melatonin reduces oxidative damage and upregulates heat shock protein 90 expression in cryopreserved human semen[J]. Free Radical Biology and Medicine, 2017, 113:347-354.

DOI

[44]
WANG J L, MENG X L, LU R H, et al. Effects of Rehmannia glutinosa on growth performance,immunological parameters and disease resistance to Aeromonas hydrophila in common carp (Cyprinus carpio L.)[J]. Aquaculture, 2015, 435:293-300.

DOI

[45]
GIRI S S, SEN S S, CHI C, et al. Effect of guava leaves on the growth performance and cytokine gene expression of Labeo rohita and its susceptibility to Aeromonas hydrophila infection[J]. Fish & Shellfish Immunology, 2015, 46(2):217-224.

文章导航

/