研究论文

柳茶多糖对环磷酰胺诱导的免疫抑制小鼠的免疫调节及抗炎作用

  • 杨许花 , 1, 2 ,
  • 郭星晨 1, 2 ,
  • 陈红 1 ,
  • 袁旭红 1 ,
  • 刘红海 3 ,
  • 高丹丹 , 1, 2, * ,
  • 马忠仁 2 ,
  • 李贞子 1
展开
  • 1 西北民族大学生命科学与工程学院,兰州 730124
  • 2 西北民族大学生物医学研究中心,兰州 730030
  • 3 甘肃烟草工业有限责任公司,兰州 730050
*高丹丹,教授,硕士生导师,E-mail:

杨许花(1992—),女,宁夏西吉人,硕士研究生,预防兽医学专业。E-mail:

收稿日期: 2022-06-23

  网络出版日期: 2023-03-16

基金资助

国家自然科学基金项目(31960461)

西北民族大学中央高校基本科研业务费资金资助项(31920220025)

西北民族大学中央高校基本科研业务费资金资助项(31920220024)

西北民族大学本科生创新项目(XBMU21139)

Immune Regulation and Anti-Inflammatory Effect of Sibiraea angustata Polysaccharides on Immunosuppressed Mice Induced by Cyclophosphamide

  • YANG Xuhua , 1, 2 ,
  • GUO Xingchen 1, 2 ,
  • CHEN Hong 1 ,
  • YUAN Xuhong 1 ,
  • LIU Honghai 3 ,
  • GAO Dandan , 1, 2, * ,
  • MA Zhongren 2 ,
  • LI Zhenzi 1
Expand
  • 1 College of Life Science and Engineering, Northwest Minzu University, Lanzhou 730124, China
  • 2 Biomedical Research Center, Northwest Minzu University, Lanzhou 730030, China
  • 3 Lanzhou Tobacco Industry Co., Ltd., Lanzhou 730050, China
*professor, E-mail:

Received date: 2022-06-23

  Online published: 2023-03-16

摘要

为研究柳茶多糖(SAPs)对免疫抑制小鼠的免疫调节及抗炎作用,利用环磷酰胺皮下注射造模法制备免疫抑制小鼠模型,并在基础上进行SAPs灌胃试验。将110只小鼠随机分成6组,即生理盐水对照组(PS组,20只)、环磷酰胺模型组(CTX组,15只)、盐酸左旋咪唑阳性组(LH组,15只)以及SAPs低、中、高剂量组(SAPs-L、SAPs-M、SAPs-H组,每组各20只),在试验第1~10天,除PS组按0.01 mL/g BW的剂量皮下注射生理盐水外,其余试验组均按照与PS组相同的剂量皮下注射80 mg/kg BW环磷酰胺(生理盐水溶解),每天1次。造模成功后,SAPs-L、SAPs-M、SAPs-H组小鼠分别按200、400、800 mg/kg BW的给药量灌胃SAPs(生理盐水溶解),LH组按30 mg/kg BW的给药量灌胃盐酸左旋咪唑(生理盐水溶解),CTX组与PS组按0.01 mL/g BW的剂量灌胃生理盐水。灌胃试验从第11天开始,每天1次,持续20 d。测定小鼠体重增长率、免疫器官(脾脏、胸腺)与内脏器官(心脏、肝脏、肺脏和肾脏)指数、碳粒廓清指数与吞噬指数、血常规指标;采用酶联免疫吸附测定法检测血浆中白细胞介素-2(IL-2)、干扰素-γ(IFN-γ)、肿瘤坏死因子-α(TNF-α)及免疫球蛋白A(IgA)含量;采用蛋清致小鼠足趾肿胀测定SAPs抗炎效果。结果显示:环磷酰胺开始造模后的第1~10天,除PS组外其他试验组小鼠体重增长率和日采食量均出现急剧下降,从第11天开始灌胃试验后,SAPs-L、SAPs-M及SAPs-H组小鼠体重增长率和日采食量逐渐上调并趋于PS组。与PS组比较,CTX组小鼠免疫器官与内脏器官指数、碳粒廓清指数与吞噬指数、血常规指标(白细胞数、红细胞数、血小板数、淋巴细胞数、中性粒细胞数、淋巴细胞百分比、单核细胞百分比和中性粒细胞百分比)以及血浆中IL-2、IFN-γ、TNF-α、IgA含量均显著或极显著降低(P<0.05或P<0.01),而SAPs-M组小鼠上述指标则较CTX组显著或极显著升高(P<0.05或P<0.01),并能有效抑制蛋清致小鼠足趾肿胀的程度。由此可知,400 mg/kg BW SAPs对环磷酰胺致免疫抑制小鼠的特异性、非特异性免疫功能具有增强作用,并能缓解蛋清所致小鼠炎性反应。

本文引用格式

杨许花 , 郭星晨 , 陈红 , 袁旭红 , 刘红海 , 高丹丹 , 马忠仁 , 李贞子 . 柳茶多糖对环磷酰胺诱导的免疫抑制小鼠的免疫调节及抗炎作用[J]. 动物营养学报, 2023 , 35(3) : 2018 -2029 . DOI: 10.12418/CJAN2023.189

Abstract

In order to study the immune regulation and anti-inflammatory effect of Sibiraea angustata polysaccharides (SAPs) on immunosuppressed mice, the immunosuppressed mice model was prepared by subcutaneous injection of cyclophosphamide, and then the gavage test was carried out. One hundred and ten mice were randomly divided into 6 groups, they were normal saline control group (PS group, 20 mice), cyclophosphamide model group (CTX group, 15 mice), levamisole hydrochloride positive group (LH group, 15 mice), and low, medium and high doses of SAPs groups (SAPs-L, SAPs-M, SAPs-H groups, and each group had 20 mice). From day 1 to 10 of the experiment, the dose of 0.01 mL/g BW normal saline was subcutaneously injected in PS group, and the other experimental groups were subcutaneously injected with cyclophosphamide (dissolved by saline solution) at the same dose as PS group, once a day. After the model was induced successfully, mice in the SAPs-L, SAPs-M, SAPs-H groups were given intragastric administration of SAPs (dissolved by saline solution) at the doses of 200, 400 and 800 mg/kg BW, respectively, mice in the LH group were given intragastric administration of levamisole hydrochloride (dissolved by saline solution) at the dose of 30 mg/kg BW, and mice in the CTX and PS groups were given intragastric administration of saline solution at the dose of 0.01 mL/g BW. The gavage test was performed once a day from day 11 for 20 days. The body weight growth rate, immune organs (spleen and thymus) and visceral organs (heart, liver, lung and kidney) indexes, carbon clearance index and phagocytic index, blood routine indexes of mice were measured. Plasma interleukin-2 (IL-2), interferon-γ (IFN-γ), tumor necrosis factor-α (TNF-α) and immunoglobulin A (IgA) contents were determined by enzyme-linked immunosorbent assay (ELASA) method. The anti-inflammatory effect of SAPs was measured by toe swelling induced by egg white. The results showed that the body weight growth rate and daily feed intake in experimental groups except PS group decreased sharply from days 1 to 10 after cyclophosphamide modeling; after the gavage test from day 11, the body weight growth rate and daily feed intake in SAPs-L, SAPs-M, SAPs-H groups upregulated gradually and tended to PS group. Compared with the PS group, the immune organs and visceral organs indexes, carbon clearance index and phagocytic index, blood routine indexes (white blood cell count, red blood cell count, platelet count, lymphocyte count, neutrophil count, lymphocyte percentage, monocyte percentage and neutrophil percentage) and plasma IL-2, IFN-γ, TNF-α and IgA contents in CTX group were significantly or extremely significantly reduced (P<0.05 or P<0.01), but those indexes in the SAPs-M group were significantly or extremely significantly higher than CTX group (P<0.05 or P<0.01), and the degree of toe swelling caused by egg white was effectively inhibited. Therefore, SAPs at the dose of 400 mg/kg BW can enhance the specific and non-specific immune function of immunosuppressed mice induced by cyclophosphamide, and can alleviate the inflammatory response of mice induced by egg white.

柳茶,又名窄叶鲜卑花,其嫩叶可作茶饮,主要分布于我国甘肃东南部、青海南部和云南北部及西藏等高海拔地区[1],是藏族民间传统珍贵的药食同源饮品,具有益气补血、益胃健脾等功效,还可用于治疗腹泻和脾胃虚弱等症状。卫阳飞等[2]研究发现,柳茶富含多种萜苷类、有机酸及多糖等活性成分,而柳茶提取物具有提高免疫功能、抗氧化和抗辐射损伤等作用[3]。经现代药理学研究证实,多糖类生物活性物质具有清热、助消化、调节脂代谢、抗氧化、抗肿瘤及增强机体免疫力等调节作用,极具研究和应用价值。
随着临床应用的不断深入,纯天然来源的植物多糖以其安全性、可及性、高效的免疫增强功效和抗炎活性而受到广泛关注,因其对固有性免疫、适应性免疫、细胞因子和机体免疫信息等方面的免疫调节作用而被作为一种天然药物广泛使用[4]。免疫细胞是免疫系统中能识别抗原、产生特异性免疫应答的基本成分,可经抗原刺激而活化、分裂增殖,继而发生特异性免疫应答的淋巴细胞等[5]。其中,炎性细胞因子以其参与机体免疫炎症的发生而得到越来越多研究学者的关注。研究证明,多种植物多糖可通过调控免疫细胞分泌免疫调控因子影响相关蛋白的表达水平,改善机体免疫力,进而发挥免疫调节作用[6-7]
目前,国内外关于柳茶的相关报道较少,只局限于简单且传统的提取工艺的优化及其化学组成分析,而关于柳茶多糖(Sibiraea angustata polysaccharides,SAPs)增强机体免疫调节作用机制及其抗炎功效的研究未见系统报道。本课题组针对SAPs提取工艺优化及体外抗氧化活性试验得出其具有较为显著的抗氧化活性[8]。在此基础上,本研究建立环磷酰胺(CTX)诱导的免疫抑制小鼠模型,观察热水提取醇沉浓缩冻干的SAPs对免疫抑制小鼠免疫调节功能的影响,旨在明确SAPs对机体免疫调节的作用机制,以期为SAPs的药理学研究和临床疾病治疗提供参考。

1 材料与方法

1.1 试验材料

1.1.1 试验动物

无特定病原体(SPF)级BALB雌性小鼠100只(18~24 g/只,5周龄)购于甘肃省兰州大学试验动物中心,在室温[(24±2) ℃]、相对湿度(68±5)%、昼夜12 h交替标准环境条件下适应性饲养1周后进行试验,适应性饲养阶段保证小鼠自由摄食和饮水。

1.1.2 材料与试剂

SAPs为自提,具体工艺为:柳茶采于甘肃省甘南藏族自治州合作市郊当周草原(102°54'E,34°58'N),经超声-微波协同辅助热水提取,并采用Sevage试剂和活性炭多重纯化法除去蛋白质及色素等杂质,后经醇沉浓缩冻干制得精制SAPs,得率为8.97%,经苯酚-硫酸法测得多糖含量为68.52%。
小鼠白细胞介素-2(IL-2)、干扰素-γ(IFN-γ)、免疫球蛋白A(IgA)和肿瘤坏死因子-α(TNF-α)试剂盒(规格:96T),盐酸左旋咪唑(LH)(纯度≥99%,批号:16595-80-5-5g),环磷酰胺(批号:6055-19-2-100 mg),肝素钠(纯度>99%,批号:9041-08-1-1g),4%多聚甲醛(批号:P1110-500 mL)均为北京索莱宝生物科技有限公司产品;无水乙醇、二甲苯等有机溶剂均为国产分析纯。

1.1.3 主要仪器及设备

Fisher-酶标仪(美国Thermo科技有限公司)、LGJ-100F-真空冷冻干燥机(北京松源华兴科技发展有限公司)、Heraeus Multifuge X1R-高速冷冻离心机(赛默飞世尔科技有限公司)、BC-2800vet-迈瑞兽用全自动血液细胞分析仪(深圳市成立泰电子设备有限公司)、BS-电子分析天平(德国赛多利斯公司)。

1.2 试验方法

1.2.1 小鼠最大耐受量试验

SAPs给药剂量分别为100、200、400、600和800 mg/kg BW,用生理盐水溶解,按照20 mL/kg BW的灌注量对小鼠进行灌胃,以测定SAPs急性毒性试验和最大耐受量试验。小鼠禁食不禁水12 h后灌胃1次,然后肉眼观察小鼠活动情况、精神状态、采食、呼吸及分泌物等5 d,结果发现小鼠除第1天出现行动迟缓、精神萎靡等情况后,后4 d状态均有所恢复且体态未发现异常或死亡。在上述设定的SAPs给药量下未测出小鼠的半数致死量(LD50),故在正式试验时确定SAPs最大给药量为800 mg/kg BW。

1.2.2 环磷酰胺构建小鼠免疫抑制模型

小鼠免疫抑制模型的构建参考文献[9]并进行适当修改(更改腹腔注射为皮下注射)。将110只小鼠随机分成6组,即生理盐水对照组(PS组,20只)、环磷酰胺模型组(CTX组,15只)、盐酸左旋咪唑阳性组(LH组,15只)以及SAPs低、中、高剂量组(SAPs-L、SAPs-M、SAPs-H组,每组各20只)。试验第1~10天,除PS组按0.01 mL/g BW的剂量皮下注射生理盐水外,其余试验组均按照与PS组相同的剂量皮下注射80 mg/kg BW环磷酰胺(生理盐水溶解),每天1次,以小鼠出现食欲匮乏、体重减轻和精神萎靡等现象为代表,证明造模成功。

1.2.3 灌胃试验

造模成功后,参照最大耐受量试验结果,设定SAPs-L、SAPs-M、SAPs-H组小鼠分别按200、400、800 mg/kg BW的给药量灌胃SAPs(生理盐水溶解),LH组按30 mg/kg BW的给药量灌胃盐酸左旋咪唑(生理盐水溶解),CTX组与PS组按0.01 mL/g BW灌胃生理盐水。灌胃试验均从第11天开始,每天1次,持续20 d。每次灌胃前2 h禁止供食。末次给药后禁食不禁水24 h后,即试验第31天,每组随机取10只小鼠称重后摘除眼球采血并处死,迅速摘取免疫器官(脾脏和胸腺)和内脏器官(心脏、肝脏、肺脏和肾脏)。

1.2.4 指标测定

1.2.4.1 体重增长率计算

体重增长率(%)=100×(W1-W0)/W0
式中:W0为初始或上次体重(g);W1为本次体重(g)。

1.2.4.2 器官指数计算[10]

将免疫器官(脾脏和胸腺)和内脏器官(心脏、肝脏、脾脏和肾脏)用生理盐水漂洗,滤纸吸干水分后进行精密称重,计算免疫器官指数和内脏器官指数,计算公式如下:
某免疫器官指数(mg/g)=该免疫器官重量(mg)/体重(g);
某内脏器官指数(mg/g)=该内脏器官重量(mg)/体重(g)。

1.2.4.3 碳粒廓清试验

参考Fang等[11]的方法,每组随机取5只小鼠,末次给药0.5 h后以10 mL/kg BW的剂量经尾静脉注射稀释印度墨水,分别在注射后2(t1)和10 min(t2)经眼眶采血1次,每次取20 μL。随后立即与4 mL 0.1% Na2CO3溶液混匀,用酶标仪在680 nm波长下测定吸光度值,计算小鼠碳粒廓清指数和吞噬指数,计算公式如下:
κ = lgOD 1 lgOD 2 t 2 t 1 ;
α = κ 1 3 × BM LM + SM
式中:κ为碳粒廓清指数;α为吞噬指数;OD1t1时采集样品的吸光度值;OD2t2时采集样品的吸光度值;BM为体重(g);LM为肝脏重量(g);SM为脾脏重量(g)。

1.2.4.4 血常规指标测定[12]

采集血液100 μL于乙二胺四乙酸(EDTA)真空采血管中,用全自动血细胞分析仪进行白细胞数(white blood cell number,WBC)、红细胞数(red blood cell number,RBC)、血小板数(platelet number,PLT)、淋巴细胞数(lymphocyte number,Lymph)、中性粒细胞数(neutrophil number,Gran)和单核细胞数(monocytes,Mon)及淋巴细胞百分比(Lymph%)、单核细胞百分比(Mon%)和中性粒细胞百分比(Gran%)等血常规指标的检测。

1.2.4.5 血浆免疫指标测定

参照文献[13]的测定方法并做适当改进(更改血清法为血浆法,因血浆保存时间更久一些)。血浆免疫指标测定在无菌离心管中按血液体积加入9倍体积抗凝剂后离心取上清液即为血浆。根据酶联免疫吸附测定(ELISA)试剂盒说明书使用多功能酶标仪对血浆中的免疫细胞因子白细胞介素-2(interleukin-2,IL-2)、干扰素-γ(interferon-γ,IFN-γ)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)以及免疫球蛋白A(immunoglobulin A,IgA)含量进行测定。

1.2.4.6 抗炎试验:蛋清性足肿胀

参考Ribeiro等[14]试验方法,PS组及SAPs组选取5只小鼠末次给药前标记并测量小鼠右后足趾厚度和足周长,给药1 h后,取30 μL/只剂量的10%鸡蛋清溶液用注射器注于右后足趾腱膜致炎,左后肢皮下注射等量生理盐水作对照。用电子游标卡尺和螺旋测微器分别测量致炎前和致炎后0.5、1.0、2.0、4.0、6.0、8.0 h小鼠右后足趾厚度,并计算足趾肿胀度,计算公式如下:
足趾肿胀度=[致炎后足趾厚度(mm)-致炎前足趾厚度(mm)]/致炎前足趾厚度(mm)。

1.3 数据统计分析

采用SPSS 13.0软件对试验数据进行单因素组间分析,并采用Duncan氏法进行多重比较,试验结果用平均值±标准差表示,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 SAPs对小鼠体重增长率和日采食量的影响

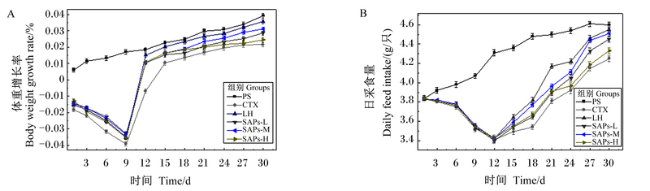
图1所示,环磷酰胺开始造模后的第1~10天除PS组外,其他试验组在体重增长率和日采食量方面均出现急剧下降。从第11天开始灌胃试验后发现,CTX组的小鼠体重增长率和日采食量呈现逐渐恢复的趋势,但增长缓慢;而SAPs-L、SAPs-M及SAPs-H组小鼠体重增长率和日采食量逐渐上调并趋于PS组和LH组,说明SAPs对小鼠体重和采食量的恢复具有较好的功效;此外,SAPs-M组比SAPs-L和SAPs-H组小鼠体重及采食量的恢复效果更好。
图1 SAPs对小鼠体重增长率(A)和日采食量(B)的影响

Fig.1 Effects of SAPs on body weight growth rate (A) and daily feed intake (B) of mice

2.2 SAPs对小鼠免疫器官及内脏器官指数的影响

2.2.1 SAPs对小鼠免疫器官指数的影响
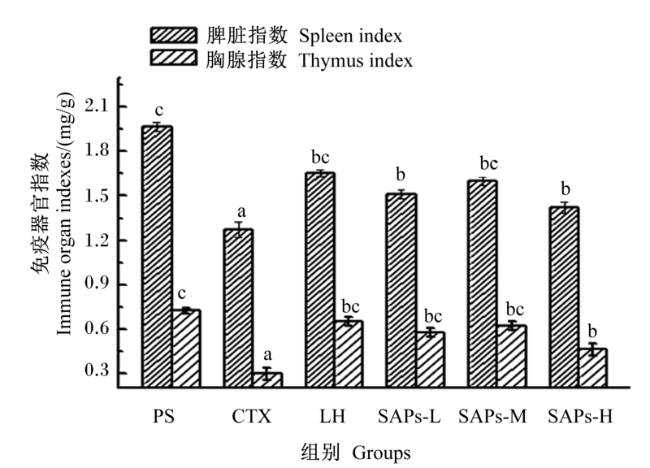
图2所示,与PS组比较,CTX组小鼠脾脏和胸腺指数显著降低(P<0.05)。SAPs-M组小鼠脾脏和胸腺指数均显著高于CTX组(P<0.05),且与PS组和LH组无显著差异(P>0.05)。上述结果表明,400 mg/kg BW的SAPs对免疫抑制小鼠免疫器官具有保护作用,以提高机体免疫功能。
图2 各组小鼠胸腺及脾脏指数的检测结果

同一指标数据柱标注不同小写字母代表显著差异(P<0.05)。

Fig.2 Test results of thymus and spleen indexes of mice in each group (n=10)

Data columns of the same index with different lowercase letters represented significant difference (P<0.05).

2.2.2 SAPs对小鼠内脏器官指数的影响

表1所示,与PS组相比,CTX组小鼠的各内脏器官指数均显著或极显著下降(P<0.05或P<0.01),表明环磷酰胺对小鼠的各内脏器官具有较严重的损伤作用。经给药后,LH、SAPs-L、SAPs-M和SAPs-H组较CTX组小鼠的各内脏器官指数均有不同程度增加且差异显著或极显著(P<0.05或P<0.01),表明SAPs可减轻免疫抑制小鼠内脏器官损伤。
表1 各组小鼠内脏器官指数的检测结果

Table 1 Test results of visceral organ indexes of mice in each group (n=10)mg/g

组别
Groups
心脏指数
Heart index
肝脏指数
Liver index
肺脏指数
Lung index
肾脏指数
Kidney index
PS 6.47±0.05 46.68±0.04 10.14±0.07 11.07±0.08
CTX 5.65±0.18 40.34±0.38 8.00±0.25 9.34±0.11
LH 6.18±0.14 45.86±0.11 9.70±0.12 10.81±0.16
SAPs-L 5.79±0.07 44.33±0.11 9.28±0.05 10.12±0.13
SAPs-M 5.96±0.11 45.08±0.09 9.38±0.13 10.47±0.16
SAPs-H 5.71±0.15 43.75±0.13 8.85±0.19 9.77±0.22
PP-value
CTX vs PS 0.001 0.018 <0.001 <0.001
LH vs CTX 0.020 0.030 <0.001 <0.001
SAPs-L vs CTX 0.018 0.031 <0.001 <0.001
SAPs-M vs CTX 0.039 0.019 <0.001 <0.001
SAPs-H vs CTX 0.023 0.028 <0.001 0.010
SAPs-M vs SAPs-L 0.402 0.064 0.439 0.028
SAPs-H vs SAPs-L 0.700 0.031 0.007 0.028
SAPs-H vs SAPs-M 0.231 0.690 0.002 <0.001

2.3 SAPs对小鼠碳粒廓清指数和吞噬指数的影响

表2可知,CTX组小鼠碳粒廓清指数和吞噬指数极显著低于PS组(P<0.01),表明CTX组小鼠碳粒廓清能力下降。与CTX组相比,SAPs-L、SAPs-M和SAPs-H组的碳粒廓清指数和吞噬指数均显著或极显著升高(P<0.05或P<0.01);各SAPs剂量组之间相比,SAPs-M组小鼠的碳粒廓清指数显著或极显著高于SAPs-L和SAPs-H组(P<0.05或P<0.01),吞噬指数极显著高于SAPs-H组(P<0.01),与SAPs-L组差异不显著(P>0.05),表明SAPs可明显改善免疫抑制小鼠单核-巨噬细胞的吞噬廓清能力。
表2 各组小鼠碳粒廓清指数和吞噬指数的比较

Table 2 Comparison of charcoal clearance index and phagocytic index of mice in each group (n=5)

组别
Groups
碳粒廓清指数
Charcoal cearance index
吞噬指数
Phagocytosis index
PS 4.33±0.13 5.23±0.13
CTX 3.05±0.08 4.17±0.14
LH 4.17±0.05 5.13±0.07
SAPs-L 3.80±0.14 4.71±0.17
SAPs-M 4.05±0.08 4.87±0.17
SAPs-H 3.75±0.08 4.47±0.18
PP-value
CTX vs PS <0.001 <0.001
LH vs CTX <0.001 <0.001
SAPs-L vs CTX <0.001 0.001
SAPs-M vs CTX <0.001 <0.001
SAPs-H vs CTX <0.001 0.025
SAPs-M vs SAPs-L 0.010 0.194
SAPs-H vs SAPs-L 0.493 0.065
SAPs-H vs SAPs-M 0.003 0.005

2.4 SAPs对小鼠血常规指标的影响

表3所示,与PS组相比,CTX组小鼠RBC、PLT、Lymph、Gran均极显著降低(P<0.01),而Mon极显著升高(P<0.01)。与CTX组比较,LH组的RBC、PLT、Lymph和Gran均极显著升高(P<0.01),Mon极显著降低(P<0.01);SAPs-L、SAPs-M、SAPs-H组的RBC、PLT、Lymph和Gran显著或极显著升高(P<0.05或P<0.01),Mon显著或极显著下降(P<0.05或P<0.01);同时,SAPs-M组的RBC、PLT、LYM极显著高于SAPs-H组(P<0.01),PLT、LYM极显著高于SAPs-L组(P<0.01)。上述结果表明SAPs干预能显著提高免疫抑制小鼠体内RBC、PLT、Lymph和Gran,增强小鼠免疫功能且以400 mg/kg BW的给药量效果最佳。
表3 各组小鼠血常规指标的比较

Table 3 Comparison of blood routine indexes of mice in each group (n=10)

组别
Groups
红细
胞数
RBC/
(×1012
个/L)
血小板数
PLT/
(×109
个/L)
淋巴细
胞数
Lymph/
(×109
个/L)
中性粒
细胞数
Gran/
(×109
个/L)
单核
细胞数
Mon/
(×109
个/L)
白细
胞数
WBC/
(×109
个/L)
淋巴细胞
百分比
Lymph%/
%
中性粒细
胞百分比
Gran%/
%
单核细胞
百分比
Mon%/
%
PS 8.94
±0.18
1 331.33
±9.01
4.68
±0.10
1.73
±0.06
0.09
±0.03
8.33
±0.46
76.10
±0.12
32.07
±0.15
4.83±
0.15
CTX 6.75
±0.17
687.67
±6.00
2.63
±0.07
0.25
±0.05
0.20
±0.04
3.80
±0.09
51.87
±0.20
20.13
±0.04
2.14±
0.17
LH 8.74
±0.06
1 003.65
±8.02
3.80
±0.12
1.53
±0.08
0.10
±0.02
6.74
±0.17
71.77
±0.11
30.23
±0.14
4.50±
0.10
SAPs-L 8.24
±0.11
913.67
±4.16
3.20
±0.06
0.79
±0.12
0.12
±0.03
5.40
±0.18
64.97
±0.21
25.43
±0.16
3.41±
0.12
SAPs-M 8.43
±0.08
963.33
±5.19
3.56
±0.19
0.91
±0.16
0.12
±0.03
5.80
±0.11
67.17
±0.15
27.38
±0.07
3.61±
0.15
SAPs-H 7.80
±0.15
869.32
±7.13
3.11
±0.05
0.66
±0.05
0.14
±0.04
4.72
±0.12
63.07
±0.17
24.01
±0.13
3.11±
0.14
PP-value
CTX vs PS <0.001 <0.001 <0.001 <0.001 0.001 <0.001 <0.001 <0.001 <0.001
LH vs CTX <0.001 <0.001 <0.001 <0.001 0.002 <0.001 <0.001 <0.001 <0.001
SAPs-L vs CTX <0.001 <0.001 <0.001 0.019 0.011 <0.001 <0.001 <0.001 <0.001
SAPs-M vs CTX <0.001 <0.001 <0.001 0.006 0.006 <0.001 <0.001 <0.001 <0.001
SAPs-H vs CTX <0.001 <0.001 <0.001 0.043 0.048 <0.001 <0.001 <0.001 <0.001
SAPs-M vs SAPs-L 0.106 0.001 0.002 0.545 0.788 0.049 0.001 0.002 0.181
SAPs-H vs SAPs-L 0.002 0.003 0.315 0.524 0.426 0.003 0.004 0.011 0.022
SAPs-H vs SAPs-M <0.001 <0.001 <0.001 0.225 0.293 <0.001 <0.001 <0.001 0.002
表3所示,小鼠经环磷酰胺诱导后,WBC、Lymph%、Gran%及Mon%较PS组极显著降低(P<0.01);SAPs-L、SAPs-M和SAPs-H组小鼠WBC、Lymph%、Gran%及Mon%较CTX组均极显著增加(P<0.01),且以SAPs-M组小鼠的WBC、Lymph%、Gran%及Mon%的提高水平表现最佳,其次为SAPs-L组。上述结果说明SAPs对免疫抑制小鼠的WBC和血细胞百分比有明显提升作用,且作用效果以400 mg/kg BW的给药量最佳。

2.5 SAPs对小鼠血浆细胞因子和IgA含量的影响

表4所示,相比PS组,CTX组小鼠血浆中细胞因子IL-2、TNF-α、IFN-γ和免疫因子IgA含量极显著下降(P<0.01),说明环磷酰胺致小鼠免疫抑制模型建模成功。SAPs-L、SAPs-M、SAPs-H组血浆中IL-2、TNF-α、IFN-γ、IgA含量均极显著高于CTX组(P<0.01),且SAPs-M组上述指标显著或极显著高于SAPs-L和SAPs-H组(P<0.05或P<0.01)。上述结果表明,SAPs可以促进树突状细胞分泌细胞因子。
表4 各组小鼠血浆IL-2、TNF-α、IFN-γ、IgA含量比较

Table 4 Comparison of plasma IL-2, TNF-α, IFN-γ and IgA contents in each group of mice (n=10)

组别
Groups
白细胞介素-2
IL-2/(ng/mL)
肿瘤坏死因子-α
TNF-α/(ng/mL)
干扰素-γ
IFN-γ/(pg/mL)
免疫球蛋白A
IgA/(ng/mL)
PS 2.76±0.09 2.61±0.04 239.52±2.13 3.82±0.04
CTX 1.71±0.03 1.21±0.05 177.61±0.72 2.37±0.05
LH 2.48±0.03 2.37±0.04 230.79±1.39 3.59±0.02
SAPs-L 2.22±0.04 1.92±0.03 215.59±0.88 3.18±0.03
SAPs-M 2.28±0.02 2.10±0.04 223.58±1.19 3.28±0.04
SAPs-H 2.19±0.03 1.74±0.13 212.21±1.36 3.04±0.10
PP-value
CTX vs PS <0.001 <0.001 <0.001 <0.001
LH vs CTX <0.001 <0.001 <0.001 <0.001
SAPs-L vs CTX <0.001 <0.001 <0.001 <0.001
SAPs-M vs CTX <0.001 <0.001 <0.001 <0.001
SAPs-H vs CTX <0.001 <0.001 <0.001 <0.001
SAPs-M vs SAPs-L 0.006 0.003 <0.001 0.044
SAPs-H vs SAPs-L 0.013 0.004 0.010 0.007
SAPs-H vs SAPs-M 0.025 <0.001 <0.001 <0.001

2.6 SAPs对蛋清致小鼠足肿胀的影响

2.6.1 SAPs对小鼠足跖厚度的影响

表5所示,各组小鼠致炎前足趾厚度的差异无统计学意义(P>0.05)。蛋清致小鼠足肿胀后,经SAPs治疗后1 h即产生抗炎作用,足跖厚度逐渐下降。小鼠足趾厚度的时间主效应和分组主效应分析表明,致炎后小鼠足趾厚度各恢复时间点间和各组间的差异具有统计学意义(P<0.01),即存在时间主效应和分组主效应,且两者之间还存在极显著的交互效应(P<0.01)。
表5 各组小鼠足跖厚度比较

Table 5 Comparison of foot plantar thickness in each group of mice (n=5)mm

组别
Groups
致炎后 After inflammation F
F-value
P
P-value
致炎前
Before
inflammation
0.5 h 1.0 h 2.0 h 4.0 h 6.0 h 8.0 h
PS 2.23±0.02 3.17±0.02 2.95±0.03 2.76±0.02 2.59±0.02 2.49±0.02 2.33±0.03 723.62 <0.001
SAPs-L 2.15±0.10 3.10±0.01 2.88±0.02 2.64±0.02 2.46±0.02 2.35±0.01 2.21±0.02 1 316.22 0.001
SAPs-M 2.14±0.01 3.08±0.02 2.86±0.02 2.61±0.02 2.42±0.01 2.24±0.02 2.18±0.02 1 335.72 <0.001
SAPs-H 2.17±0.01 3.11±0.02 2.88±0.03 2.68±0.02 2.49±0.02 2.36±0.02 2.22±0.02 1 022.74 0.001
FF-value 1.922 2.881 76.335 40.850 22.869 14.641 4.330
PP-value 0.164 0.062 0.007 0.001 <0.001 <0.001 0.017

F时间主效应=1 293.46,P时间主效应<0.001;F分组主效应=30.70,P分组主效应<0.001;F交互效应=940.44,P交互效应<0.001。

Fmain effect of time=1 293.46, Pmain effect of time<0.001; Fmain effect of group=30.70, Pmain effect of grou<0.001; Finteraction=940.44, Pinteraction<0.001.

2.6.2 SAPs对小鼠足跖肿胀度的影响

表6所示,各组小鼠致炎前足跖肿胀度的差异无统计学意义(P>0.05)。给药致炎后0.5 h达足趾肿胀度峰值,之后随时间延长缓慢下降。与PS组相比,SAPs-L、SAPs-M和SAPs-H组小鼠均表现出一定的抗炎活性。小鼠足趾肿胀度时间主效应和分组主效应分析表明,致炎后恢复时间点间和各组间的差异具有统计学意义(P<0.01),即存在时间主效应和分组主效应,且两者之间还存在极显著的交互作用(P<0.01)。
表6 各组小鼠足跖肿胀度比较

Table 6 Comparison of foot plantar swelling degree in each group of mice (n=5)

组别
Groups
致炎后 After inflammation F
F-value
P
P-value
0.5 h 1.0 h 2.0 h 4.0 h 6.0 h 8.0 h
PS 0.99±0.03 0.81±0.04 0.63±0.04 0.55±0.02 0.30±0.02 0.13±0.01 477.06 <0.001
SAPs-L 0.95±0.03 0.73±0.03 0.48±0.02 0.33±0.03 0.18±0.02 0.06±0.02 856.79 0.004
SAPs-M 0.95±0.02 0.73±0.03 0.45±0.01 0.28±0.02 0.17±0.01 0.05±0.02 958.22 0.001
SAPs-H 0.96±0.02 0.77±0.03 0.56±0.03 0.34±0.02 0.22±0.02 0.08±0.02 730.53 0.006
FF-value 0.345 5.723 20.802 16.697 37.600 4.973
PP-value 0.876 0.006 0.002 <0.001 <0.001 0.011

F时间主效应=1 355.56,P时间主效应<0.001;F分组主效应=38.05,P分组主效应<0.001;F交互效应=358.70,P交互效应<0.001。

Fmain effect of time=1 355.56, Pmain effect of time<0.001; Fmain effect of group=38.05, Pmain effect of grou<0.001; Finteraction=358.70, Pinteraction<0.001.

3 讨论

天然来源植物多糖以其来源的广泛性、安全且毒副作用小,以及对机体免疫的多效性等优势日益引起国内外学者的重视和开发[15]。越来越多的研究表明,植物多糖在抗病毒、抑菌和抗肿瘤、降血糖、降血脂和抗血栓等上均表现出较好的功效,又因其特有的生理活性和天然来源的安全性,在保健品和功能性食品中具有强大的应用潜力。
随着研究地不断深入,国内外学者发现蛹虫草多糖[16]、黄芪多糖[17]和人参多糖[18]等多种植物多糖均表现出显著的免疫调节功能以提高机体巨噬细胞及淋巴细胞等免疫活性。随着越来越多的植物多糖被发现具有免疫调节功能,其免疫活性机理、功效因子也愈加明确和清晰[19],调节红细胞免疫,影响蛋白质的合成和抗体的生成,从而达到影响机体免疫信息以提高免疫系统对抗原的识别能力和机体免疫系统损伤造成的免疫耐受能力等[16]
脾脏和胸腺是机体最重要的免疫器官,免疫器官指数的改变可直观反映多糖等受试药物对免疫系统的刺激作用,故脾脏指数和胸腺指数成为小鼠免疫功能测试的重要指标[20-21],而小鼠内脏器官指数的测定对于免疫低下小鼠模型构建是否成功具有重要参考价值[22]。刘红萍等[23]发现白芷多糖以剂量依赖性对环磷酰胺所致免疫低下模型小鼠免疫器官发挥保护作用,胸腺指数和脾脏指数分别达(0.21±0.07) mg/g和(0.47±0.11) mg/g。本试验中,SAPs-M组小鼠脾脏和胸腺指数均显著高于CTX组,说明SAPs具有抑制小鼠内脏器官损伤功效,并与白酒发酵副产品多糖[24]提高小鼠免疫调节作用效果表现出一致性,均表现出对内脏器官损伤后起到一定的恢复性。但目前关于SAPs在小鼠机体内具体发挥功效的作用方式和表达机理尚不明确。作为血常规检测指标中最具代表性的RBC、WBC,其是免疫调节试验中最常见的研究指标。红细胞主要通过细胞表面补体受体的蛋白质黏附免疫复合物,经免疫复合物被巨噬细胞吞噬以提高机体免疫功能[25]。王小兰等[26]研究发现,生地黄多糖可实现对环磷酰胺致免疫低下小鼠的干预而显著提高免疫抑制小鼠体内相关血常规指标,从而增强小鼠免疫功能。本试验结果显示SAPs具有与生地黄多糖相似的作用功效。与红细胞不同的是,白细胞增多常见于自身免疫性疾病、病毒感染和药物性骨髓抑制等疾病[27]。相雪莲等[28]通过研究白术多糖对自身免疫低下小鼠的影响发现,WBC及相关血常规指标较免疫低下组有所改善,白术多糖表现出免疫低下修复功能。本试验结果显示SAPs与白术多糖具有相似的免疫修复功效,由此说明SAPs可作为一种潜在的免疫抑制增强剂。细胞因子是由淋巴细胞、树突状细胞等免疫细胞分泌的潜在调节靶点,树突状细胞作为目前功能最强的抗原呈递细胞,可直接诱导淋巴细胞增殖参与免疫应答[29],因其作用机理不同而被分为白细胞介素、干扰素、肿瘤坏死因子和生长因子等,主要通过结合相应受体来调节细胞生长分化和调控免疫应答[17]。在一定浓度范围内,多糖能与免疫细胞表面的特异性受体结合而激活胞内各种信号转导通路,以提升脾淋巴细胞体外分泌的IL-2、IL-4等细胞因子使其直接作用杀伤靶细胞,从而在分子水平调节机体的免疫功能[30-32]
近年来,随着现代药理、药化分析技术水平的飞速发展,国内外学者对植物多糖的生理功能作用机制的进一步深入研究多借助于化学、药理学和生物学等相关方面的研究,将进一步加深多糖免疫活性作用机理的理论探索。目前研究表明,柳茶提取物具有增强免疫功能、抗氧化和抗辐射损伤等作用,而多糖作为柳茶主要的生物活性物质其对机体免疫调节的功效日渐受到研究者关注。机体的免疫功能通常由细胞免疫、体液免疫以及非特异性免疫反应组成。脾脏和胸腺作为最主要的免疫器官,其指数可直观地反映机体的功能状况。巨噬细胞通过分泌多种细胞因子来发挥其免疫功能,被作为评估生物活性成分免疫调节功能的重要载体[33-34]。本试验中,SAPs能提升环磷酰胺致免疫抑制小鼠的胸腺指数和脾脏指数,并通过调节细胞因子IL-2和IFN-γ的分泌有效地缓解环磷酰胺诱导的小鼠免疫应激,通过调节机体细胞炎性因子TNF-α的释放缓解蛋清所致小鼠炎性反应,最终改善机体免疫功能。

4 结论

综上所述,SAPs对环磷酰胺致免疫抑制小鼠的特异性、非特异性免疫功能具有增强作用,并有较好的抗炎作用,且在400 mg/kg BW剂量时效果最为显著。
[1]
杨帆, 赫雪, 杨远, 等. 藏药柳茶水提物降脂效果研究[J]. 中国民族民间医药, 2019, 28(18):26-28,45.

YANG F, HE X, YANG Y, et al. Effect of Tibet drug Liucha extracts on the fat loss of mouse[J]. Chinese Journal of Ethnomedicine and Ethnopharmacy, 2019, 28(18):26-28,45. (in Chinese)

[2]
卫阳飞, 宋海, 宗盈晓, 等. 分级醇沉柳茶多糖的含量与单糖组成及抗氧化性研究[J]. 华西药学杂志, 2018, 33(6):599-603.

WEI Y F, SONG H, ZONG Y X, et al. Study on the content,monosaccharide composition and antioxidant activity of the Sibiraea angustata polysaccharides precipitated by gradient ethanol[J]. West China Journal of Pharmaceutical Sciences, 2018, 33(6):599-603. (in Chinese)

[3]
李容, 陈华国, 周欣. 植物多糖免疫调节机制研究进展[J]. 天然产物研究与开发, 2018, 30(11):2017-2022,2031.

LI R, CHEN H G, ZHOU X. Immunomodulatory effects of plant polysaccharides:a review of the mechanisms[J]. Natural Product Research and Development, 2018, 30(11):2017-2022,2031. (in Chinese)

[4]
吴振奎, 钟丽花, 刘延霞, 等. 女贞子多糖联合布地奈德在哮喘幼鼠模型中的免疫调节及抗氧化作用研究[J]. 中国免疫学杂志, 2022, 38(9):1069-1074,1081.

WU Z K, ZHONG L H, LIU Y X, et al. Immunomodulatory and antioxidant effects of Ligustrum vicaryi L. fruit polysaccharide combined with budesonide on asthmatic young mice model[J]. Chinese Journal of Immunology, 2022, 38(9):1069-1074,1081. (in Chinese)

[5]
杨艳君, 李畅, 陈菲菲, 等. 淫羊藿多糖组成分析及其免疫调节作用研究[J]. 中国中药杂志, 2022, 47(16):4358-4364.

YANG Y J, LI C, CHEN F F, et al. Composition and immunomodulatory activity of neutral and acidic polysaccharides isolated from Epimedii Folium[J]. China Journal of Chinese Materia Medica, 2022, 47(16):4358-4364. (in Chinese)

[6]
黄娟, 黄金莉, 孙佳悦, 等. 岩藻多糖对免疫低下小鼠模型免疫功能和肠道菌群的调节作用[J]. 中国食品学报, 2022, 22(5):92-102.

HUANG J, HUANG J L, SUN J Y, et al. The effect of fucoidan on immune and intestinal flora in immunocompromised mice[J]. Journal of Chinese Institute of Food Science and Technology, 2022, 22(5):92-102. (in Chinese)

[7]
刘思美, 赵鹏, 张婷婷, 等. 地黄硒多糖的合成、表征及免疫活性分析[J]. 中国中药杂志, 2022, 47(11):2938-2946.

LIU S M, ZHAO P, ZHANG T T, et al. Synthesis,characterization,and immunological activity of Rehmannia glutinosa seleno-polysaccharides[J]. China Journal of Chinese Materia Medica, 2022, 47(11):2938-2946. (in Chinese)

[8]
YANG X H, YANG J T, LIU H H, et al. Extraction,structure analysis and antioxidant activity of Sibiraea laevigata (L.) Maxim polysaccharide[J]. International Journal of Food Properties, 2022, 25(1):2267-2285.

DOI

[9]
LI S X, BAO F Y, CUI Y. Immunoregulatory activities of the selenylated polysaccharides of Lilium davidii var. unicolor Salisb in vitro and in vivo[J]. International Immunopharmacology, 2021, 94:107445.

[10]
CHEN H R C, JIAO H W, CHENG Y, et al. In vitro and in vivo immunomodulatory activity of okra (Abelmoschus esculentus L.) polysaccharides[J]. Journal of Medicinal Food, 2016, 19(3):253-265.

DOI

[11]
FANG L L, ZHANG Y Q, XIE J B, et al. Royal sun medicinal mushroom,Agaricus brasiliensis (agaricomycetidae),derived polysaccharides exert immunomodulatory activities in vitro and in vivo[J]. International Journal of Medicinal Mushrooms, 2016, 18(2):123-132.

DOI

[12]
王晶, 常世民, 闫训友, 等. 阿魏侧耳胞外多糖生物活性初步研究[J]. 西南农业学报, 2014, 27(4):1433-1437.

WANG J, CHANG S M, YAN X Y, et al. Bioactivitiy of extracellular polysaccharides produced by Pleurotus ferulae Lanzi[J]. Southwest China Journal of Agricultural Sciences, 2014, 27(4):1433-1437. (in Chinese)

[13]
GAO Z Z, ZHANG C, JING L R, et al. The structural characterization and immune modulation activitives comparison of Codonopsis pilosula polysaccharide (CPPS) and selenizing CPPS (sCPPS) on mouse in vitro and vivo[J]. International Journal of Biological Macromolecules, 2020, 160:814-822.

DOI

[14]
RIBEIRO N A, ABREU T M, CHAVES H V, et al. Sulfated polysaccharides isolated from the green seaweed Caulerpa racemosa plays antinociceptive and anti-inflammatory activities in a way dependent on HO-1 pathway activation[J]. Inflammation Research, 2014, 63(7):569-580.

DOI

[15]
杨许花, 赵梦潇, 陈红, 等. 植物多糖免疫调节作用机制研究进展[J]. 食品安全质量检测学报, 2021, 12(13):5349-5355.

YANG X H, ZHAO M X, CHEN H, et al. Advances in research on the mechanism of immunomodulatory effects of plant polysaccharides[J]. Journal of Food Safety & Quality, 2021, 12(13):5349-5355. (in Chinese)

[16]
BI S X, HUANG W J, CHEN S, et al. Cordyceps militaris polysaccharide converts immunosuppressive macrophages into M1-like phenotype and activates T lymphocytes by inhibiting the PD-L1/PD-1 axis between TAMs and T lymphocytes[J]. International Journal of Biological Macromolecules, 2020, 150:261-280.

DOI

[17]
HOU Y C, WU J M, WANG M Y, et al. Modulatory effects of Astragalus polysaccharides on T-cell polarization in mice with polymicrobial sepsis[J]. Mediators of Inflammation, 2015, 2015:826319.

[18]
YANG X B, LV Y, TIAN L M, et al. Composition and systemic immune activity of the polysaccharides from an herbal tea (Lycopus lucidus Turcz)[J]. Journal of Agricultural and Food Chemistry, 2010, 58(10):6075-6080.

DOI

[19]
HOU L H, MENG M, CHEN Y Y, et al. A water-soluble polysaccharide from Grifola frondosa induced macrophages activation via TLR4-MyD88-IKKβ-NF-κB p65 pathways[J]. Oncotarget, 2017, 8(49):86604-86614.

DOI

[20]
罗青, 禄璐, 闫亚美, 等. 枸杞粉及其多糖对环磷酰胺致免疫低下小鼠免疫及肠道菌群的调节作用[J]. 食品科学, 2022, 43(11):137-148.

LUO Q, LU L, YAN Y M, et al. Immunomodulatory effects of spray dried powder of goji (Lycium barbarum L.) and goji polysaccharides on immunosuppressive mice induced by cyclophosphamide and their regulation on gut microbiota[J]. Food Science, 2022, 43(11):137-148. (in Chinese)

[21]
GAO Z Z, CHEN J, QIU S L, et al. Optimization of selenylation modification for garlic polysaccharide based on immune-enhancing activity[J]. Carbohydrate Polymers, 2016, 136:560-569.

DOI PMID

[22]
于悦, 陈卓, 王亚非, 等. 蛹虫草胞外多糖的制备、结构分析及其免疫活性[J]. 食品科学, 2021, 42(23):106-113.

YU Y, CHEN Z, WANG Y F, et al. Preparation,structure and immuneomodulatory activity of exopolysaccharide from Cordyceps militaris[J]. Food Science, 2021, 42(23):106-113. (in Chinese)

[23]
刘红萍, 吴江, 王芬, 等. 白芷多糖对免疫低下模型小鼠免疫调节作用的研究[J]. 四川医学, 2020, 41(11):1126-1131.

LIU H P, WU J, WANG F, et al. Study on the immunomodulatory effects of Angelicae dahuricae radix polysaccharide on immunosuppressive mice[J]. Sichuan Med J, 2020, 41(11):1126-1131. (in Chinese)

[24]
EOM S J, KIM T W, KIM S, et al. Immune-enhancing effects of polysaccharide extract of by-products of Korean liquor fermented by Saccharomyces cerevisiae[J]. International Journal of Biological Macromolecules, 2021, 188:245-252.

DOI PMID

[25]
王建东, 李毓华, 马学礼, 等. 枸杞多糖、黄芪多糖和蜂胶多糖对小鼠免疫效果的对比试验[J]. 动物医学进展, 2020, 41(12):80-84.

WANG J D, LI Y H, MA X L, et al. Comparative study on immune effects of Lycium barbarum polysaccharides,Astragalus polysaccharides and propolis polysaccharides in mice[J]. Progress in Veterinary Medicine, 2020, 41(12):80-84. (in Chinese)

[26]
王小兰, 段鹏飞, 杨梦, 等. 生地黄多糖对环磷酰胺诱导的免疫抑制小鼠的免疫调节作用研究[J]. 上海中医药大学学报, 2021, 35(1):55-60,92.

WANG X L, DUAN P F, YANG M, et al. Study on immunomodulatory effects of Radix Rehmanniae Recens polysaccharide on cyclophosphamide-induced immunosuppression in mice[J]. Academic Journal of Shanghai University of Traditional Chinese Medicine, 2021, 35(1):55-60,92. (in Chinese)

[27]
周惠萍, 周东海, 彭宇轩. 苦瓜多糖对环磷酰胺诱导的免疫抑制小鼠免疫功能的影响[J]. 湖北科技学院学报(医学版), 2021, 35(1):5-8.

ZHOU H P, ZHOU D H, PENG Y X. Effects of Momordica charantia polysaccharide on cyclophosphamide-induced immunosuppressive mice[J]. Journal of Hubei University of Science and Technology (Medical Sciences), 2021, 35(1):5-8. (in Chinese)

[28]
相雪莲, 许丹宁, 曹楠, 等. 白术多糖对环磷酰胺诱导的免疫抑制小鼠白细胞数量及功能的修复作用[J]. 中国兽医杂志, 2020, 56(7):36-41,2.

XIANG X L, XU D N, CAO N, et al. The repair effect of polysaccharide of Atractylodes macrocephala Koidz induced by cyclophosphamide on the number and function of white blood cells of immunosuppressive mice[J]. Chinese Journal of Veterinary Medicine, 2020, 56(7):36-41,2. (in Chinese)

[29]
吴荣杰, 杨丽丽, 佟欣, 等. 刺松藻水溶性多糖抗肿瘤及免疫调节作用研究[J]. 中草药, 2012, 43(3):529-533.

WU R J, YANG L L, TONG X, et al. Antitumor activity of water-soluble polysaccharides from Codium fragile and its immunomodulation[J]. Chinese Traditional and Herbal Drugs, 2012, 43(3):529-533. (in Chinese)

[30]
CHEN Z E, WUFUER R, JI J H, et al. Structural characterization and immunostimulatory activity of polysaccharides from Brassica rapa L.[J]. Journal of Agricultural and Food Chemistry, 2017, 65(44):9685-9692.

DOI

[31]
YU Q, NIE S P, WANG J Q, et al. Molecular mechanism underlying chemoprotective effects of Ganoderma atrum polysaccharide in cyclophosphamide-induced immunosuppressed mice[J]. Journal of Functional Foods, 2015, 15:52-60.

DOI

[32]
董竹平. 辣木叶多糖的分离纯化、结构表征及免疫活性研究[D].硕士学位论文. 广州: 华南理工大学, 2018.

DONG Z P. Isolation,purification,structural identification and immunostimulatory activity of polysaccharides from the leaves of Moringa oleifera[D].Master's Thesis. Guangzhou: South China University of Technology, 2018. (in Chinese)

[33]
李苹, 卢柏林, 邓时贵, 等. 不同分子量醋柴胡多糖对Raw264.7巨噬细胞抗炎免疫活性的影响[J]. 中国现代应用药学, 2020, 37(10):1153-1156.

LI P, LU B L, DENG S G, et al. Study on anti-inflammatory and immunomodulatory activity of vinegar Bupleuri Radix polysaccharides with different molecular weight on Raw264.7 macrophage[J]. Chinese Journal of Modern Applied Pharmacy, 2020, 37(10):1153-1156. (in Chinese)

[34]
范信晖, 李科, 杨一丹, 等. 黄芪多糖中抗炎组分的结构及其活性的初步研究[J]. 山西医科大学学报, 2021, 52(10):1346-1356.

FAN X H, LI K, YANG Y D, et al. Preliminary study on structure and activity of anti-inflammatory components in Astragalus polysaccharides[J]. Journal of Shanxi Medical University, 2021, 52(10):1346-1356. (in Chinese)

文章导航

/