研究论文

竹叶黄酮对过氧化氢诱导的奶牛乳腺上皮细胞氧化损伤的保护作用

  • 詹经纬 ,
  • 李欣 * ,
  • 关淑文 ,
  • 刘明 , ** ,
  • 蒋林树
展开
  • 北京农学院动物科学技术学院,奶牛营养学北京市重点实验室,北京 102206
** 刘 明,教授,博士生导师,E-mail:

*同等贡献作者

詹经纬(1997—),男,安徽铜陵人,硕士研究生,研究方向为反刍动物营养与免疫。E-mail:

Copy editor: 菅景颖

收稿日期: 2022-08-18

  网络出版日期: 2023-04-12

基金资助

2022分类发展定额项目-人才引进启动经费(5066516004/003)

北京市教育委员会重点项目(KZ202010020029)

Protective Effect of Bamboo Leaf Flavonoids on Oxidative Damage of Bovine Mammary Epithelial Cells Induced by Hydrogen Peroxide

  • ZHAN Jingwei ,
  • LI Xin * ,
  • GUAN Shuwen ,
  • LIU Ming , ** ,
  • JIANG Linshu
Expand
  • Beijing Key Laboratory of Cow Nutrition, College of Animal Science and Technology, Beijing Agricultural University, Beijing 102206, China
** professor, E-mail:

*Contributed equally

Received date: 2022-08-18

  Online published: 2023-04-12

摘要

本试验旨在筛选建立过氧化氢(H2O2)诱导的奶牛乳腺上皮细胞氧化应激模型的最佳条件,并探究竹叶黄酮(BLF)对奶牛乳腺上皮细胞氧化损伤的保护作用。以奶牛乳腺上皮细胞MAC-T细胞系为研究对象,将维持培养基中处理的MAC-T设为对照组,在维持培养基中添加不同浓度(200~1 000 μmol/L)H2O2处理的MAC-T设为氧化损伤组,在维持培养基中添加80 μg/mL BLF和800 μmol/L H2O2处理的MAC-T设为BLF预处理组。采用细胞增殖试剂盒(CCK-8)法检测细胞活力,采用乳酸脱氢酶(LDH)法检测细胞凋亡率,每次试验平行孔6个,重复试验3次。利用倒置荧光显微镜观察细胞内活性氧(ROS)含量的变化,利用试剂盒法检测细胞内抗氧化指标的变化,利用实时荧光定量PCR法检测细胞线粒体损伤相关基因表达的变化,利用流式细胞仪检测细胞线粒体膜电位(MMP)的变化。结果显示:1)600和800 μmol/L H2O2刺激细胞6和8 h符合建模条件,细胞活力为80.77%~72.81%,细胞凋亡率为20.79%~43.52%;2)与对照组相比,800 μmol/L H2O2刺激细胞8 h可显著提升ROS含量(P<0.05),显著抑制过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)和总超氧化物歧化酶(T-SOD)活性(P<0.05);3)与对照组相比,800 μmol/L H2O2刺激细胞8 h对B淋巴细胞瘤/白血病-2(Bcl-2)的mRNA相对表达量无显著影响(P>0.05),但可显著增加B淋巴细胞瘤/白血病-2相关X蛋白(Bax)的mRNA相对表达量(P<0.05),并使Bax/Bcl-2比值显著增加(P<0.05),同时显著增加MMP去极化细胞比例(P<0.05);4)与氧化损伤组相比,80 μg/mL BLF预处理24 h能显著提高细胞活力(P<0.05),显著降低ROS含量(P<0.05),显著提高CAT和GSH-Px活性(P<0.05),显著降低Bax的mRNA相对表达量(P<0.05),显著提高Bcl-2的mRNA相对表达量(P<0.05),使Bax/Bcl-2比值显著降低(P<0.05)。综上所述,本试验成功建立了H2O2诱导的MAC-T氧化应激模型,最佳条件为800 μmol/L H2O2处理8 h。BLF可以抑制H2O2诱导的MAC-T凋亡和ROS生成,缓解线粒体损伤并恢复抗氧化能力,保护MAC-T抵御H2O2诱导的氧化损伤。

本文引用格式

詹经纬 , 李欣 , 关淑文 , 刘明 , 蒋林树 . 竹叶黄酮对过氧化氢诱导的奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2023 , 35(4) : 2616 -2628 . DOI: 10.12418/CJAN2023.244

Abstract

The purpose of this study was to screen the best conditions for the establishment of oxidative stress model of bovine mammary epithelial cells induced by hydrogen peroxide (H2O2), and to explore the protective effect of bamboo leaf flavonoids (BLF) on oxidative damage of bovine mammary epithelial cells. Experiments used bovine mammary epithelial cells MAC-T cell line as research object. MAC-T treated with the maintenance medium as control group, different concentrations (200 to 1 000 μmol/L) of H2O2 were added into the maintenance medium as oxidative damage group, 80 μg/mL BLF and 800 μmol/L H2O2 were added into the maintenance medium as BLF pretreatment group. The cell viability of MAC-T was detected by CCK-8 assay and the cell apoptosis rate was detected by lactate dehydrogenase (LDH) method. There were 6 parallel multiple holes in each test and repeated three times. The changes of intracellular ROS content were observed by inverted fluorescence microscope, antioxidant indexes were detected by kit method. Flow cytometry were used to analyze the mitochondrial membrane potential (MMP) changes, and the changes of the expression of mitochondria damage related genes were detected by real-time fluorescence quantitative PCR. The results showed as follows: 1) the cells stimulated by 600 and 800 μmol/L H2O2 for 6 and 8 h were in accordance with the modeling conditions, the cell viability was 80.77% to 72.81%, and the cell apoptosis rate was 20.79% to 43.52%, respectively. 2) Compared with the control group, 800 μmol/L H2O2 significantly increased the content of intracellular ROS and significantly inhibited the activities of catalase (CAT), glutathione peroxidase (GSH-Px) and total superoxide dismutase (T-SOD) after 8 h treatment (P<0.05). 3) Compared with the control group, 800 μmol/L H2O2 had no significant effect on the mRNA relative expression level of B-cell lymphoma/leukemia-2 (Bcl-2)(P>0.05), but significantly increased the mRNA relative expression level of Bcl-2 associated X protein (Bax) and the ratio of Bax/Bcl-2 (P<0.05), and significantly increased the proportion of MMP depolarized cells after 8 h treatment (P<0.05). 4) Compared with oxidative damage group, treatment with 80 μg/mL BLF for 24 h could significantly increase cell viability (P<0.05), significantly decreased the content of intracellular ROS (P<0.05), significantly increased the activities of CAT and GSH-Px (P<0.05), significantly decreased the mRNA relative expression level of Bax and the ratio of Bax/Bcl-2 (P<0.05), while significantly increased the mRNA relative expression level of Bcl-2 (P<0.05). In conclusion, the oxidative stress model of MAC-T induced by H2O2 is successfully established in this experiment, and the best treatment conditions are 800 μmol/L H2O2 treat for 8 h. BLF pretreatment can inhibit apoptosis and ROS production of MAC-T induced by H2O2, alleviate mitochondrial damage and restore antioxidant capacity, and protect MAC-T from oxidative damage induced by H2O2.

正常情况下,生物体内的氧化和抗氧化系统处于动态平衡状态。若暴露于有害因素或病理条件下,生物体会产生过量的活性氧(reactive oxygen species,ROS),当超过机体抗氧化系统的清除能力时,就会导致氧化应激[1],包括细胞大分子的氧化修饰、细胞凋亡以及结构组织损伤[2]。奶牛在围产期时,能量需求增多但采食量下降造成能量负平衡(negative energy balance,NEB)以及受分娩应激影响,极易发生氧化应激[3];在泌乳期间,奶牛的乳腺上皮细胞代谢旺盛,营养素消化代谢增多,引起快速的脂质代谢,进一步增加脂肪组织分泌调控脂质代谢和氧化应激因子,特别是在高产奶牛中更易发生氧化应激[4];奶牛在采食后瘤胃内厌氧发酵,运动和产奶后代谢产热增加,当超过自身的散热能力时会发生热应激,尤其是夏天外界温度高湿度大,制约了奶牛体表的散热,会加剧热应激的发生。热应激期间会造成机体的氧化应激,导致免疫能力降低,膜系统受损[5]。由此可见,氧化应激存在于奶牛生产中的各个时期,导致奶牛生产性能下降,疾病的易感性增强,使乳房炎、子宫炎、酮病、脂肪肝等代谢疾病的发生率增加,造成巨大的经济损失。
竹叶黄酮(bamboo leaf flavonoids,BLF)是一种天然酚类抗氧化剂,具有抗菌、抗炎、调节血脂、提高免疫性能等多种生物活性,特别是抗氧化效果显著,并且具有无残留、无污染的优点[6-10],可以运用于缓解奶牛的氧化应激。李成贤等[11]研究发现,在肉牛饲粮中添加80 g/d的竹叶提取物(黄酮含量为41.2%)可以显著提高血清中免疫球蛋白G(IgG)和白细胞介素-10(IL-10)的含量,显著降低白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)的含量,增强肉牛的免疫能力。本实验室前期研究结果表明,在奶牛自然热应激状态下向其饲粮中添加1.3 g/kg DM的竹叶提取物(黄酮含量为41.2%),可以显著提高奶牛的产奶量和乳蛋白率,降低乳中体细胞数,显著提高血清中超氧化物歧化酶(T-SOD)和谷胱甘肽过氧化物酶(GSH-Px)的活性,增强了奶牛的泌乳性能和抗氧化能力[12]。由此可见,BLF在奶牛生产试验中已经证实了其作用效果,但BLF对氧化应激奶牛乳腺的保护作用及机理尚不清楚。因此,本研究采用可以使细胞产生高度活性自由基的过氧化氢(H2O2)构建奶牛乳腺上皮细胞氧化应激模型[13],并探明BLF对氧化损伤的奶牛乳腺上皮细胞的保护效果,为进一步研究BLF发挥抗氧化功能的潜在机制奠定基础。

1 材料与方法

1.1 试验材料

奶牛乳腺上皮细胞MAC-T细胞系为东北农业大学动物生物化学与分子生物学实验室馈赠;竹叶购自陕西某天然制品有限公司,BLF由本实验室参考张英[14]的方法利用热回流法自行提取,提取效率1%~3%,总黄酮含量为20%~26%;DMEM/F12培养基(货号:11995-065/11765-054)、澳洲胎牛血清(FBS,货号:10099-141)、青霉素/链霉素溶液(货号:15140-122)、0.25%胰蛋白酶-乙二胺四乙酸(EDTA,货号:25200-056)购自美国Gibco公司;磷酸盐缓冲液(PBS,货号:P1022)购自北京索莱宝科技有限公司;Cell Counting Kit-8(CCK-8)活力检测试剂盒(货号:GB707)购自日本同仁化学研究所;乳酸脱氢酶(LDH)定量测定试剂盒(货号:C0017)和增强型线粒体膜电位(MMP)检测试剂盒(货号:C2003S)购自碧云天生物技术有限公司;ROS检测试剂盒(货号:E004-1-1)、谷胱甘肽过氧化物酶(GSH-Px)检测试剂盒(货号:A005-1-2)、总超氧化物歧化酶(T-SOD)检测试剂盒(货号:A001-1-2)、过氧化氢酶(CAT)检测试剂盒(货号:A007-1-1)购自南京建成生物工程研究所;总RNA提取试剂盒(货号:12183018A)购自赛默飞公司;cDNA反转录试剂盒(货号:AG11706)和SYBRTM Premix ExTaq Ⅱ(货号:AG11702)购自北京艾瑞克生物有限公司。

1.2 试验设计

1.2.1 H2O2诱导MAC-T氧化应激模型的建立

将细胞接种于96孔板中,分别在含0(对照组)、200、400、600、800、1 000 μmol/L H2O2的培养液中培养2、4、6、8、12 h,通过测定细胞活力与凋亡率筛选H2O2有效作用浓度及时间,每次试验平行孔6个,重复试验3次。根据测定结果,选取用600、800 μmol/L H2O2刺激6、8 h进行后续试验。将细胞接种于6孔板,分别添加0(对照)、600、800 μmol/L H2O2培育6、8 h后,测定细胞内ROS含量以及T-SOD、CAT、GSH-Px活性,收集总RNA检测线粒体损伤相关基因B淋巴细胞瘤/白血病-2(Bcl-2)、B淋巴细胞瘤/白血病-2相关X蛋白(Bax)的相对表达量,每次试验平行孔2个,重复试验3次。通过上述指标筛选H2O2的最佳作用浓度与时间,建立氧化应激模型。

1.2.2 BLF最佳作用浓度的确定

将细胞接种于96孔板中,分别在含0(对照组)、5、10、20、40、60、80、100、120、140、160、180、200、220、240、280、300 μg/mL BLF的维持培养基中培育24 h,测定细胞活力以筛选BLF的安全有效浓度。通过比较细胞活力,选取10、20、40、60、80 μg/mL的BLF进行后续试验。将细胞分为7组,分别为对照组、氧化损伤以及10、20、40、60、80 μg/mL BLF预处理组。其中,对照组细胞接种于不添加任何物质的维持培养基中培养24 h;氧化损伤组细胞接种于添加了800 μmol/L H2O2的维持培养基中培养6 h;5个BLF预处理组细胞分别接种于添加了10、20、40、60、80 μg/mL BLF的维持培养基中培养24 h,弃去原培养液,D'Hanks缓冲液清洗2遍,加入含800 μmol/L H2O2的维持培养基中继续培养6 h。每次试验平行孔6个,重复试验3次。到待检测时间点时进行细胞活力的测定,筛选BLF最佳作用浓度。

1.2.3 BLF对H2O2诱导的MAC-T氧化应激的保护作用

将细胞接种于6孔板中,放置于37 ℃、5% 二氧化碳(CO2)培养箱中培养,待细胞融合度为80%左右时分为4组,分别为对照组、氧化损伤组、BLF预处理组和BLF组。其中,对照组细胞接种于不添加任何物质的维持培养基中培养24 h;氧化损伤组细胞接种于添加了800 μmol/L H2O2的维持培养基中培养6 h;BLF预处理组细胞接种于添加了80 μg/mL BLF的维持培养基中培养24 h后,更换含800 μmol/L H2O2的维持培养基中继续培养6 h;BLF组细胞接种于添加了80 μg/mL BLF的维持培养基中培养24 h。每次试验平行复孔3个,重复试验3次。到待检测时间点时测定细胞内ROS含量以及T-SOD、CAT、GSH-Px活性,收集总RNA检测BaxBcl-2基因相对表达量。

1.3 试验方法

1.3.1 细胞培养

MAC-T复苏后,置于完全培养液(DMEM/F12+1%青霉素/链霉素溶液+10% FBS)中在37 ℃、5% CO2的培养箱中培养,待细胞融合度达80%时进行传代,稳定传代3次后进行试验。

1.3.2 细胞活力的测定

96孔板中每孔接种200 μL MAC-T悬浮液(MAC-T浓度为1×10⁵个/mL),当细胞密度达到80%时,弃去培养液,用PBS洗2遍后加入含0(对照组)、200、400、600、800、1 000 μmol/L H2O2的培养液中培养2、4、6、8、12 h,弃去培养液,每孔再加入100 μL维持培养基和10 μL CCK-8试剂后继续培养3 h,用酶标仪测定各孔450 nm的吸光度(OD450 nm)值,各组所得OD450 nm值均减去本底OD450 nm值后按以下公式计算细胞活力:
细胞活力(%)=(试验组OD450nm值/对照组OD450 nm值)×100。

1.3.3 细胞凋亡率测定

细胞处理与分组方法同1.3.2,达到待检测时间点后按照LDH试剂盒说明,使用酶标仪在490 nm处测定吸光度(OD490 nm)值,各组OD490 nm值均减去本底OD490 nm值后按以下公式计算细胞的LDH释放率:
LDH释放率(%)=[(试验组OD490 nm值-对照组OD490 nm值)/(最大酶活性组OD490 nm值-对照组OD490 nm值)]×100。

1.3.4 细胞内ROS含量的测定

6孔板每孔底部放置1片细胞爬片,接种2 mL MAC-T悬浮液(浓度为1×10⁵个/mL),放置于37 ℃、5% CO2培养箱中培养,待细胞融合度为80%左右时,按照1.2.3的分组进行处理,于待检测时间点用PBS洗2遍,加入含10 μmol/L二氯二氢荧光素-乙酸乙酯(DCFH-DA)的无血清培养液,置于细胞培养箱避光孵育30 min,弃去含探针的培养液,用PBS缓冲液反复吹打至细胞脱落,收集于2 mL离心管中,清洗2次后100×g离心5 min,重悬于PBS中制备单细胞悬液。利用倒置荧光显微镜拍照观察,用Image J软件量化荧光强度。

1.3.5 MMP去极化细胞比例的测定

按照1.2.3的步骤将MAC-T进行培养和处理。随后,加入JC-1染料工作液,37 ℃孵育30 min,之后在37 ℃下用10 μmol/L的细胞凋亡诱导剂(CCCP)处理细胞30 min,再用JC-1染料工作液于37 ℃孵育30 min后,用无血清细胞培养液洗涤细胞3次,以充分去除细胞外的JC-1染料,正常细胞中JC-1聚集在线粒体基质中产生红色荧光,MMP降低(去极化)时,JC-1不能聚集,转变为单体产生绿色荧光。最后使用流式细胞仪在488 nm处激发捕捉红色和绿色荧光数目,计算红色荧光强度与绿色荧光强度的比值,即为MMP去极化细胞比例。

1.3.6 细胞抗氧化指标的测定

按照1.2.3的步骤将MAC-T进行培养和处理。随后,按照相关试剂盒说明使用酶标仪分别在405、412和550 nm的吸收波长下测定吸光度值,通过计得出算CAT、GSH-Px和T-SOD活性。

1.3.7 细胞线粒体损伤相关基因表达的测定

按照1.2.3的步骤将MAC-T进行培养和处理。随后,按照总RNA提取试剂盒提取细胞总RNA,之后采用cDNA反转录试剂盒将其反转录为cDNA,反应条件为:37 ℃,15 min;85 ℃,5 s。以三磷酸甘油醛脱氢酶(GAPDH)作为内参基因,采用实时荧光定量PCR方法检测线粒体损伤相关基因的mRNA相对表达量。实时荧光定量PCR采用两步法进行,反应条件:95 ℃预变性30 s,1个循环;60 ℃退火30 s,60 ℃ 延伸5 s,60个循环。引物序列见表1。采用2-△△Ct法计算目的基因的mRNA相对表达量。
表1 引物序列

Table 1 Primer sequences

基因
Genes
GenBank登录号
GenBank accession No.
引物序列
Primer sequences
三磷酸甘油醛脱氢酶
GAPDH
NM_001034034.2 F:5'-GTTCAACGGCACAGTCAAG-3'
R:5'-TACTCAGCACCAGCATCAC-3'
B淋巴细胞瘤/白血病-2相关X蛋白
Bax
NM_173894.1 F:5'-TGCTTCAGGGTTTCATCC-3'
R:5'-CTTCAGACACTCGCTCAG-3'
B淋巴细胞瘤/白血病-2
Bcl-2
NM_001166486.1 F:5'-TTCTCCTGGCTGTCTCTG-3'
R:5'-CTGCTTCTTGAATCTTCTGC-3'

1.4 数据统计与分析

试验结果用平均值±标准差表示。采用Excel 2019进行试验数据的初步整理,并应用SPSS 21.0进行单因素方差分析(one-way ANOVA),P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 H2O2诱导MAC-T氧化应激模型的建立

2.1.1 不同浓度H2O2对MAC-T细胞活力与毒性的影响
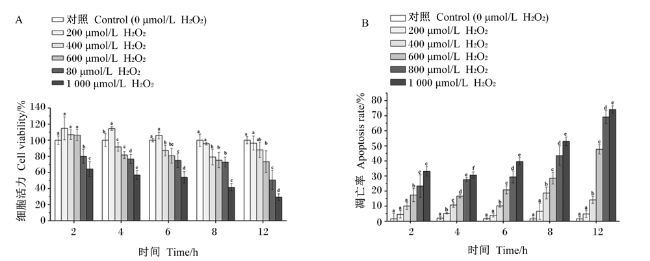
为了确定氧化应激模型中H2O2处理的最佳作用浓度和时间,采用浓度分别为0、200、400、600、800、1 000 μmol/L的H2O2处理细胞2、4、6、8、12 h后,检测细胞损伤程度。CCK-8法测定的细胞活力如图1-A所示。从图中可以看出,H2O2对细胞的损伤作用呈剂量与时间依赖性。与对照组相比,200 μmol/L H2O2刺激细胞2、4、6、8、12 h均未显著降低细胞活力(P>0.05),说明其未对细胞产生明显损伤作用;400、600 和800 μmol/L H2O2刺激细胞4 h可显著降低细胞活力(P<0.05),刺激8 h可引起20%以上细胞活力丧失;当H2O2浓度达到1 000 μmol/L时,刺激细胞2 h后细胞活力降低40%,造成细胞不可逆损伤。
图1 不同浓度H2O2对MAC-T细胞活力与凋亡率的影响

A:不同浓度H2O2作用不同时间对MAC-T细胞活力的影响;B:不同浓度H2O2作用不同时间对MAC-T细胞凋亡率的影响。数据柱标注不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of different concentrations of H2O2 on MAC-T cell viability and apoptosis rate

A: effects of different concentrations and time of H2O2 on MAC-T cell viability; B: effects of different concentrations and time of H2O2 on MAC-T apoptosis rate. Value bars with different letters mean significant difference (P<0.05). The same as below.

LDH法测定的细胞凋亡率如图1-B所示。由图可知,200 μmol/L H2O2刺激细胞2、6、8、12 h对细胞凋亡率均未产生显著影响(P>0.05);400、600、800、1 000 μmol/L H2O2刺激细胞4 h以上均引起细胞凋亡率显著增加(P<0.05),且800 μmol/L H2O2刺激细胞12 h及1 000 μmol/L H2O2刺激细胞8 h后均造成细胞凋亡率高于50%。
综合以上2个检测结果,为模拟生理状态下的氧化损伤,保证后续试验一定的细胞数量及BLF预处理的保护效果,选择600和800 μmol/L H2O2刺激细胞6和8 h进行后续试验,在该条件下细胞活力为80.77%~72.81%,细胞凋亡率为20.79%~43.52%。

2.1.2 不同浓度H2O2对MAC-T氧化还原水平的影响

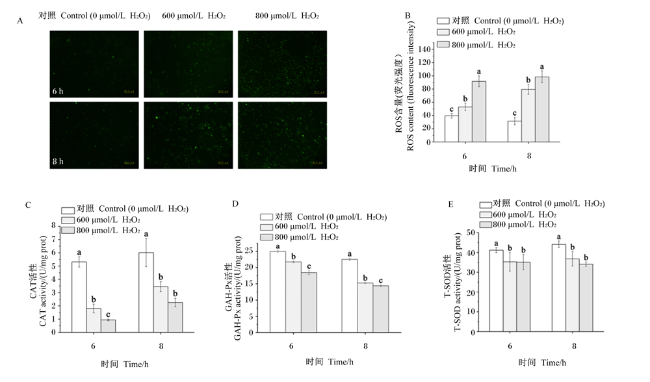
应用荧光显微镜观察细胞内ROS含量随H2O2作用浓度和时间的变化(图2-A)。与对照组相比,600和800 μmol/L H2O2刺激细胞6或8 h后均可显著增加细胞内ROS含量(P<0.05),且在800 μmol/L H2O2刺激细胞8 h后达到最高值(图2-B)。600和800 μmol/L H2O2刺激细胞6或8 h也显著降低细胞内CAT、GSH-Px和T-SOD的活性(P<0.05)(图2-C、图2-D、图2-E),并且相对于600 μmol/L H2O2,800 μmol/L H2O2能进一步抑制GSH-Px的活性。这些结果表明H2O2刺激细胞能引起细胞内氧化损伤,并抑制细胞的抗氧化能力。后续试验选择800 μmol/L H2O2刺激细胞8 h作为H2O2的作用浓度及时间。
图2 不同浓度H2O2对MAC-T氧化还原水平的影响

图A为通过DCFH-DA(绿色荧光)成像,观察H2O2(600或800 μmol/L,6或8 h)处理对细胞内ROS含量的影响,绿色荧光强度越强,ROS含量越高。图6-A同。

Figure A Effects of different concentrations of H2O2 on redox level of MAC-T

showed the effects of H<sub>2</sub>O<sub>2</sub> (600 or 800 μmol/L, 6 or 8 h) on ROS content in cells through DCFH-DA (green fluorescence) imaging. The stronger the green fluorescence intensity, the higher the ROS content. The same as <xref ref-type="fig" rid="F6">Fig.6</xref>-A.

2.1.3 不同浓度H2O2对MAC-T线粒体损伤相关指标的影响

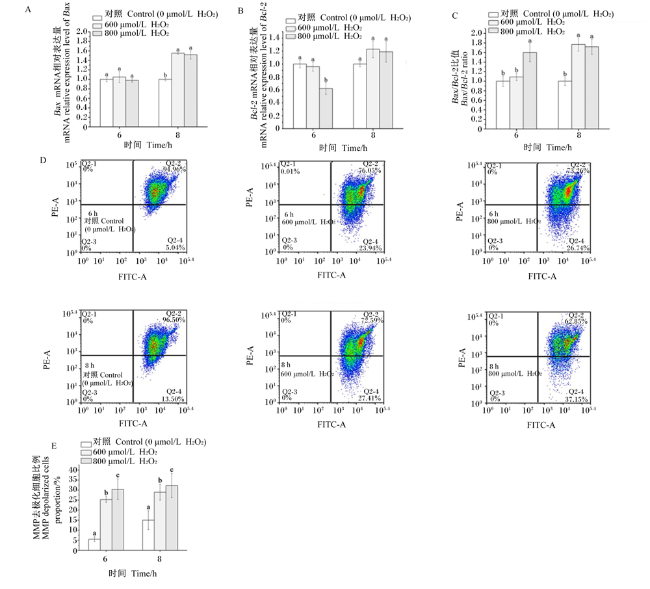
图3-A所示,与对照组相比,600和800 μmol/L H2O2刺激细胞6 h后对细胞内Bax的mRNA相对表达量无显著影响(P>0.05),但随着刺激时间增加到8 h,Bax的mRNA相对表达量显著增加(P<0.05),且Bax/Bcl-2比值显著升高(图3-C)。如图3-B所示,与对照组相比,800 μmol/L H2O2刺激细胞6 h后可显著降低细胞内Bcl-2的mRNA相对表达量(P<0.05),且Bax/Bcl-2比值显著升高(图3-C),随着刺激时间增加到8 h,Bcl-2的mRNA相对表达量恢复至正常水平。与对照组相比,600和800 μmol/L H2O2刺激细胞6和8 h后均会显著增加MMP去极化细胞比例(P<0.05)(图3-E),且与H2O2作用时间和浓度呈正相关关系。因此,后续试验选择800 μmol/L H2O2处理细胞8 h检测BaxBcl-2 mRNA表达变化以及Bax/Bcl-2比值变化。
图3 不同浓度H2O2对MAC-T线粒体损伤相关指标的影响

图D为流式细胞仪MMP结果(FITC-A:绿色荧光;PE-A:红色荧光),红色荧光强度与绿色荧光强度的比值(Q2-4区)为MMP去极化细胞比例。

Figure D Effects of different concentrations of H2O2 on mitochondria damage related indexes in MAC-T

was the results of MMP by flow cytometry (FITC-A: green fluorescence; PE-A: red fluoresence), and the ratio of red fluorescence intensity to green fluorescence intensity (Q2-4 region) was the proportion of MMP depolarized cells.

2.2 BLF的安全有效浓度

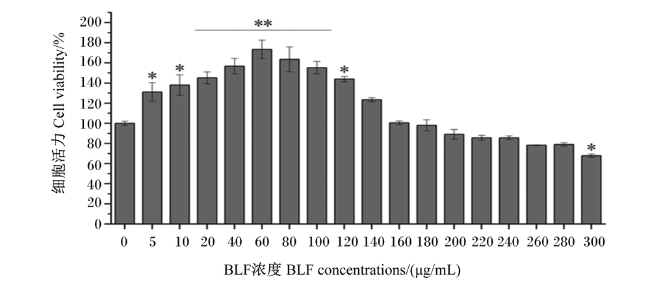
图4所示,与对照组相比,浓度为5、10、20、40、60、80、100、120 μg/mL的BLF均能显著或极显著提高细胞活力(P<0.05或P<0.01);随着BLF浓度逐渐升高至180 μg/mL后,细胞活力均低于对照组;BLF浓度达到300 μg/mL则会造成细胞活力较对照组显著降低(P<0.05)。因此,本试验选取10、20、40、60、80 μg/mL的BLF进行后续试验。
图4 不同浓度BLF对MAC-T细胞活力的影响

与对照组相比,数据柱标记*表示差异显著(P<0.05),标记**表示差异显著(P<0.01)。

Fig.4 Effects of different concentrations of BLF on MAC-T cell viability

Compare with the control group, value columns with * mean significant difference (P<0.05), and with ** mean extremely significant difference (P<0.01).

2.3 BLF对H2O2诱导的MAC-T氧化损伤后细胞活力的影响

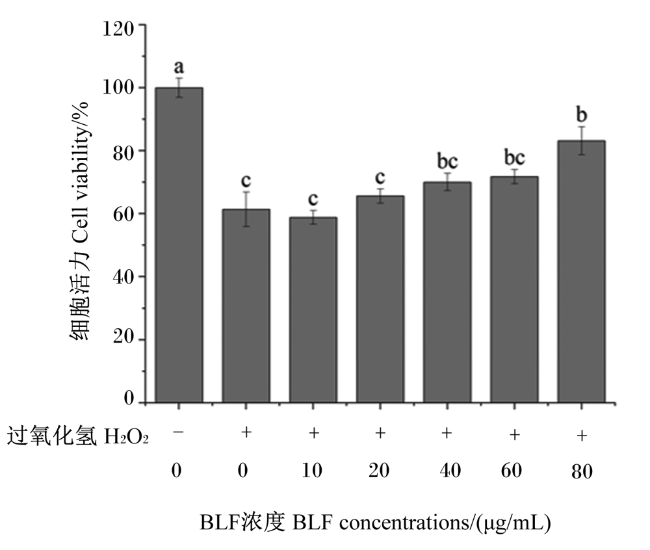
图5所示,与对照组相比,氧化损伤组的细胞活力显著降低(P<0.05)。用10、20、40、60 μg/mL的BLF预处理细胞24 h对细胞活力的恢复效果不显著(P>0.05);用80 μg/mL的BLF预处理细胞24 h后,可显著减少H2O2对细胞活力的损害(P<0.05)。因此,选择80 μg/mL的BLF预处理细胞24 h进行后续试验。
图5 BLF对H2O2诱导的MAC-T氧化损伤后细胞活力的影响

Fig.5 Effects of BLF on cell viability of MAC-T induced by H2O2 after oxidative damage

2.4 BLF对H2O2诱导的MAC-T氧化还原水平的影响

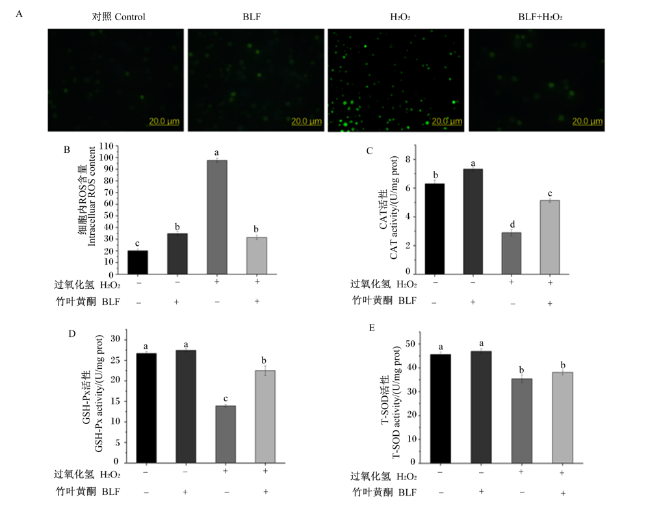
图6-A可知,与对照组相比,H2O2刺激引起细胞内ROS含量显著上升(P<0.05),BLF预处理可以抑制H2O2刺激诱导的ROS产生(P<0.05)。由图6-C、图6-D和图6-E可知,与对照组相比,BLF组CAT活性显著提高(P<0.05);与氧化损伤组相比,BLF预处理可以显著缓解H2O2引起的CAT和GSH-Px活性降低(P<0.05)。
图6 BLF对H2O2诱导的MAC-T氧化还原水平的影响

Fig.6 Effects of BLF on redox level of MAC-T induced by H2O2

2.5 BLF对H2O2诱导的MAC-T线粒体损伤相关基因表达的影响

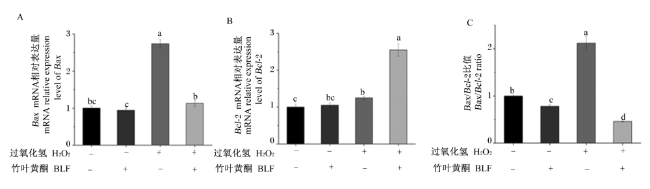
图7可知,与对照组相比,BLF单独处理可以显著降低Bax/Bcl-2比值(P<0.05),H2O2处理显著增加了Bax的mRNA相对表达量及Bax/Bcl-2比值(P<0.05);与氧化损伤组相比,BLF预处理组可以显著抑制Bax的mRNA相对表达量的上调(P<0.05),显著提高Bcl-2的mRNA相对表达量(P<0.05),使Bax/Bcl-2比值显著降低(P<0.05)。由此说明,BLF预处理可以减少H2O2诱导的MAC-T线粒体损伤。
图7 BLF对H2O2诱导的MAC-T线粒体损伤相关基因表达的影响

Fig.7 Effects of BLF on expression of mitochondria damage related genes of MAC-T induced by H2O2

3 讨论

目前,细胞模型法是研究氧化应激和抗氧化的主要方法之一,通过应激源破坏细胞内氧化还原平衡,对细胞内RNA、DNA、蛋白质和脂质等造成损伤,模拟机体内氧化应激状态[15],既可以研究体内外有害物质对细胞氧化损伤的效果和机制,也可以有效评价和筛选抗氧化剂[16]。H2O2作为一种ROS,由于其高膜通透性而诱导细胞毒性,造成细胞内大分子氧化损伤,最终导致细胞衰老、死亡和突变等严重后果[17]。因此,H2O2诱导的细胞氧化应激模型普遍用于探究自由基介导的细胞损伤机制及抗氧化剂对氧化损伤的保护和修复机制[18]
在构建氧化应激模型时,细胞活力在70%左右为宜,适合后续试验的开展;细胞活力高于80%说明细胞状态较好,未发生明显损伤;细胞活力低于60%说明细胞开始大量死亡,并逐渐出现不可逆的损伤,不利于后续试验进行[19]。本研究中采用600 μmol/L H2O2刺激细胞6 h后,细胞活力逐渐低于80%,12 h后低至73.27%;用800 μmol/L H2O2刺激细胞6和8 h后细胞活力分别为74.81%和72.81%,符合模型建立的要求。与氧化损伤组相比,加入低浓度(10 μg/mL)BLF预处理并不能阻止H2O2造成的细胞活力丧失,20、40和60 μg/mL的BLF虽然无法显著提升细胞活力,但可以将细胞活力提升至60%以上,缓解了细胞的不可逆损伤;随着BLF浓度增加到80 μg/mL,细胞活力提升至80%以上,说明细胞状态恢复至较高水平。然而,我们发现低浓度以及短时间的H2O2处理会促进细胞的增殖,这可能是因为ROS在氧化还原稳态中的双重性[20-21],虽然高浓度的H2O2会对细胞造成严重的氧化损伤,但适度浓度的H2O2可以作为一种有用的“应激”信号来触发细胞的生存机制[20,22]。金鹿等[23]利用H2O2建立奶牛乳腺上皮细胞(BMECs)氧化应激模型的结果也佐证了这一观点,短时间内(0~4 h)用0~1 000 μmol/L的H2O2处理细胞反而可以增加细胞数量,低浓度(0~400 μmol/L)H2O2处理细胞的12 h内细胞数量不断增长;使细胞存活率降低到70%~80%的处理条件为,800 μmol/L H2O2处理细胞4 h、600 μmol/L H2O2处理细胞6或8 h,与本试验结果与此相似。本试验最终选取800 μmol/L H2O2处理细胞8 h作为建模条件,该H2O2浓度与鲁文赓等[24]、张元锌等[19]建立氧化应激模型选用的H2O2浓度有区别,可能是因为不同细胞种类对H2O2的耐受性不同,且细胞培养液、H2O2储存方式等因素均会造成建模条件在不同实验室之间有所差异。
奶牛在泌乳期时,乳腺上皮细胞需要大量能量,代谢加快,线粒体在有氧代谢过程中产生大量ROS[25]。当机体抗氧化和促氧化过程失衡会导致氧化应激,引起细胞损伤和凋亡[26]。为了防止蛋白质和脂类等生物分子的氧化损伤,细胞发展出多种抗氧化和解毒机制[20,22]。如机体内的抗氧化酶系统,包括SOD、CAT和GSH-Px,清除过量ROS以保护细胞免受氧化损伤[27]。但是,这是一种代偿机制,若氧化应激持续存在,这种代偿机制很快就会失代偿[28],因此需要植物提取物进一步加强抗氧化能力。本试验中,600和800 μmol/L H2O2刺激细胞6和8 h均能显著增加细胞内ROS含量,显著降低细胞内抗氧化酶SOD、CAT和GSH-Px的活性;在加入BLF预处理后,缓解了H2O2造成的ROS含量升高,一定程度上恢复了抗氧化酶SOD、CAT和GSH-Px的活性。张守丽等[29]的研究也表明BLF可以降低氧化损伤的HepG2细胞内ROS和丙二醛(MDA)含量。上述结果说明BLF对氧化损伤的MAC-T具有保护作用。
线粒体是各种细胞的主要动力工厂,MMP是指线粒内膜两侧不对称质子形成的电化学梯度,促进ADP向ATP转化,是产生能量的核心[30]。过程中伴随着线粒体氧化呼吸链形成ROS,因此也更容易受到ROS的攻击[31]。过量的ROS会破坏呼吸链,增加质子的线粒体通透性,从而导致MMP下降[32]。Bcl-2家族蛋白主要作用于线粒体外膜,主要包括以Bax为代表的促凋亡因子和以Bcl-2为代表的抗凋亡因子,这些因子间相互作用构成调控线粒体凋亡信号通路网络。Bax和Bcl-2可通过控制线粒体膜的通透性来调节激活物如细胞色素c的释放来影响细胞状态,两者对线粒体介导的细胞凋亡发挥核心作用[33]。一方面,Bcl-2与Bax形成异聚体降低线粒体膜通透性,Bax二聚体在膜上打开通道增加线粒体膜通透性;另一方面,Bcl-2蛋白可抑制半胱氨酸天冬氨酸蛋白酶3(Caspase3)的活性,发挥抗凋亡作用[34]。因此,Bax表达的升高和Bcl-2表达的下降表明线粒体损伤加剧,表现为Bax/Bcl-2比值上升。本研究结果发现,800 μmol/L H2O2刺激细胞8 h会使Bax的mRNA相对表达量显著增加,导致Bax/Bcl-2比值上升。值得注意的是,Bcl-2的mRNA相对表达量在H2O2刺激后先显著降低,8 h时恢复正常水平,这与金晓露[35]的研究结果相似,随着H2O2刺激细胞时间从4 h延长到24 h,Bax的表达不断上升,但Bcl-2的表达先上升后趋于平衡,两者比值不断增大。这说明细胞有一定的自我调节能力,但无法缓解H2O2导致的线粒体损伤加剧,最终导致细胞凋亡率增加。当加入BLF预处理后,细胞内Bax的mRNA相对表达量和Bax/Bcl-2比值都有所降低,说明BLF可以降低H2O2诱导的MAC-T线粒体膜通透性增强;同时,Bax/Bcl-2比值下降会减少细胞凋亡级联反应[36],佐证了BLF的抑制细胞凋亡作用。

4 结论

采用800 μmol/L H2O2刺激细胞8 h可成功构建MAC-T氧化应激模型。在体外培养条件下,添加80 μg/mL BLF预处理细胞24 h可以保护MAC-T抵御H2O2造成的氧化损伤,表现为BLF可以抑制H2O2诱导的MAC-T细胞活力降低,恢复H2O2破坏的MAC-T内氧化还原平衡,缓解H2O2刺激造成的线粒体损伤。
[1]
LI S, TAN H Y, WANG N, et al. The role of oxidative stress and antioxidants in liver diseases[J]. International Journal of Molecular Sciences, 2015, 16(11):26087-26124.

DOI PMID

[2]
LYKKESFELDT J, SVENDSEN O. Oxidants and antioxidants in disease:oxidative stress in farm animals[J]. Veterinary Journal, 2007, 173(3):502-511.

DOI

[3]
BOUWSTRA R J, GOSELINK R M, DOBBELAAR P, et al. The relationship between oxidative damage and vitamin E concentration in blood,milk,and liver tissue from vitamin E supplemented and nonsupplemented periparturient heifers[J]. Journal of Dairy Science, 2008, 91(3):977-987.

DOI

[4]
BARBATO O, HOLMES B, FILIPESCU I E, et al. Dietary supplementation of yerba mate (Ilex paraguariensis) during the dry period improves redox balance in lactating dairy cows[J]. Antioxidants, 2019, 8(2):38.

DOI

[5]
ZENG T, LI J J, WANG D Q, et al. Effects of heat stress on antioxidant defense system,inflammatory injury,and heat shock proteins of Muscovy and Pekin ducks:evidence for differential thermal sensitivities[J]. Cell Stress & Chaperones, 2014, 19(6):895-901.

DOI

[6]
WANG L, BAI M, QIN Y, et al. Application of ionic liquid-based ultrasonic-assisted extraction of flavonoids from bamboo leaves[J]. Molecules, 2018, 23(9):2309.

DOI

[7]
MA X, YAN R A, YU S Q, et al. Enzymatic acylation of isoorientin and isovitexin from bamboo-leaf extracts with fatty acids and antiradical activity of the acylated derivatives[J]. Journal of Agricultural and Food Chemistry, 2012, 60(43):10844-10849.

DOI PMID

[8]
张英. 天然功能性竹叶提取物——竹叶黄酮[J]. 中国食品添加剂, 2002(3):54-58.

ZHANG Y. Natural functional extract of bamboo leave-bamboo leaf anthoxanthin[J]. China Food Additives, 2002(3):54-58. (in Chinese)

[9]
阮振婷, 王留超, 吴志伟, 等. 竹叶黄酮对萧山鸡公鸡精液品质和血液生理生化指标的影响[J]. 中国畜牧杂志, 2022, 58(3):109-114.

RUAN Z T, WANG L C, WU Z W, et al. Effects of bamboo leaf flavonoids on semen quality and blood physiological and biochemical indexes of Xiaoshan chickens[J]. Chinese Journal of Animal Science, 2022, 58(3):109-114. (in Chinese)

[10]
杨敏, 张盛, 王玄源, 等. 竹叶黄酮中的抗炎有效成分及其对不同小鼠炎症模型的药效学研究[J]. 湖北中医杂志, 2017, 39(3):1-5.

YANG M, ZHANG S, WANG X Y, et al. Reach on anti-inflammatory effects of flavonoids from Phyllostachys heterocycla on different inflammation model system and its chemical compositions[J]. Hubei Journal of Traditional Chinese Medicine, 2017, 39(3):1-5. (in Chinese)

[11]
李成贤, 曹洪志, 易宗容, 等. 竹叶提取物对肉牛生长性能、营养物质表观消化率、血清抗氧化和免疫指标的影响[J]. 饲料研究, 2021, 44(12):10-14.

LI C X, CAO H Z, YI Z R, et al. Effect of bamboo leaf extract on growth performance,nutrients apparent digestibility,serum antioxidant and immune indexes of beef cattle[J]. Feed Research, 2021, 44(12):10-14. (in Chinese)

[12]
李义, 童津津, 栗明月, 等. 竹叶提取物对热应激奶牛泌乳性能及血清生化、抗氧化和免疫指标的影响[J]. 动物营养学报, 2021, 33(2):900-912.

DOI

LI Y, TONG J J, LI M Y, et al. Effects of bamboo leaf extract on lactation performance and indexes of biochemical,antioxidant and immune in serum of dairy cows during heat stress[J]. Chinese Journal of Animal Nutrition, 2021, 33(2):900-912. (in Chinese)

[13]
AMRI F, GHOUILI I, AMRI M, et al. Neuroglobin protects astroglial cells from hydrogen peroxide-induced oxidative stress and apoptotic cell death[J]. Journal of Neurochemistry, 2017, 140(1):151-169.

DOI PMID

[14]
张英. 一种添加竹叶黄酮提取物的保健啤酒:CN199810004563.8[P]. 1999-09-22.

ZHANG Y. A health beer with bamboo flavonoids extract:CN199810004563.8[P]. 1999-09-22. (in Chinese)

[15]
PETROU A L, TERZIDAKI A. A meta-analysis and review examining a possible role for oxidative stress and singlet oxygen in diverse diseases[J]. Biochemical Journal, 2017, 474(16):2713-2731.

DOI PMID

[16]
何方婷, 陈嘉熠, 徐佳伊, 等. 氧化应激细胞模型建立的研究进展[J]. 食品工业科技, 2019, 40(7):341-345.

HE F T, CHEN J Y, XU J Y, et al. Research progress of establishing cellular oxidative stress model[J]. Science and Technology of Food Industry, 2019, 40(7):341-345. (in Chinese)

[17]
BEG A A, RUBEN S M, SCHEINMAN R I, et al. I kappa B interacts with the nuclear localization sequences of the subunits of NF-kappa B:a mechanism for cytoplasmic retention[J]. Genes & Development, 1992, 6(10):1899-1913.

DOI

[18]
BAO D K, WANG J K, PANG X B, et al. Protective effect of quercetin against oxidative stress-induced cytotoxicity in rat pheochromocytoma (PC-12) cells[J]. Molecules, 2017, 22(7):1122.

DOI

[19]
张元锌, 王闫宇, 云艳虹, 等. 山羊乳腺上皮细胞氧化损伤模型的建立[J]. 中国畜牧兽医, 2022, 49(5):1917-1925.

ZHANG Y X, WANG Y Y, YUN Y H, et al. Establishment of oxidative damage model of goat mammary epithelial cells[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(5):1917-1925. (in Chinese)

[20]
SCHERZ-SHOUVAL R, ELAZAR Z. Regulation of autophagy by ROS:physiology and pathology[J]. Trends in Biochemical Sciences, 2011, 36(1):30-38.

DOI

[21]
UNDERWOOD B R, IMARISIO S, FLEMING A, et al. Antioxidants can inhibit basal autophagy and enhance neurodegeneration in models of polyglutamine disease[J]. Human Molecular Genetics, 2010, 19(17):3413-3429.

DOI PMID

[22]
SIES H, BERNDT C, JONES D P. Oxidative stress[J]. Annual Review of Biochemistry, 2017, 86:715-748.

DOI PMID

[23]
金鹿, 闫素梅, 史彬林, 等. 过氧化氢诱导的奶牛乳腺上皮细胞氧化损伤模型的建立[J]. 动物营养学报, 2014, 26(12):3651-3658.

DOI

JIN L, YAN S M, SHI B L, et al. Establishment of oxidative damage model of bovine mammary epithelial cells induced by hydrogen peroxide[J]. Chinese Journal of Animal Nutrition, 2014, 26(12):3651-3658. (in Chinese)

[24]
鲁文赓, 司琳清, 田春雨, 等. 奶牛子宫内膜上皮细胞氧化应激模型的建立及奶牛脂肪间充质干细胞对其迁移的影响[J]. 中国畜牧兽医, 2022, 49(7):2506-2514.

LU W G, SI L Q, TIAN C Y, et al. Establishment of oxidative stress model of bovine endometrial epithelial cells and the effects of bovine adipose-derived mesenchymal stem cells on cell migration[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(7):2506-2514. (in Chinese)

[25]
GREEN D R, GALLUZZI L, KROEMER G. Mitochondria and the autophagy-inflammation-cell death axis in organismal aging[J]. Science, 2011, 333(6046):1109-1112.

DOI PMID

[26]
LIOCHEV S I. Reactive oxygen species and the free radical theory of aging[J]. Free Radical Biology & Medicine, 2013, 60:1-4.

DOI

[27]
DEVOS D, MOREAU C, DEVEDJIAN J C, et al. Targeting chelatable iron as a therapeutic modality in Parkinson's disease[J]. Antioxidants & Redox Signaling, 2014, 21(2):195-210.

[28]
李文娟. Nrf2激动剂通过促进自噬对泛素化蛋白聚合物的清除保护氧化应激诱导的胰岛β细胞损伤的作用及机制[D]. 博士学位论文. 济南: 山东大学, 2014.

LI W J. Nrf2 activator enhances autophagic clearance and viability of beta-cells in a setting of oxidative stress[D]. Ph.D.Thesis. Jinan: Shandong University, 2014. (in Chinese)

[29]
张守丽, 陆梦琪, 刘俊慧, 等. 竹叶黄酮提取物对HepG2细胞氧化应激的调节作用[J]. 中国果菜, 2020, 40(6):65-70,76.

ZHANG S L, LU M Q, LIU J H, et al. Bamboo leaf flavonoid c-glycosides extracts alleviate ROS production induced by oleic acid in HepG2 cells[J]. China Fruit & Vegetable, 2020, 40(6):65-70,76. (in Chinese)

[30]
PELLETIER-GALARNEAU M, DETMER F J, PETIBON Y, et al. Quantification of myocardial mitochondrial membrane potential using PET[J]. Current Cardiology Reports, 2021, 23(6):70.

DOI

[31]
CAO S T, WANG C C, YAN J T, et al. Curcumin ameliorates oxidative stress-induced intestinal barrier injury and mitochondrial damage by promoting Parkin dependent mitophagy through AMPK-TFEB signal pathway[J]. Free Radical Biology & Medicine, 2020, 147:8-22.

DOI

[32]
许梦然, 王迦琦, 高婧雯, 等. 北五味子多糖提取工艺优化及其对LPS刺激巨噬细胞线粒体膜电位的保护作用[J]. 食品工业科技, 2020, 41(20):33-40.

XU M R, WANG J Q, GAO Q W, et al. Optimization of extraction technology of Schisandra chinensis polysaccharide and its protective effect on LPS induced mitochondrial membrane potential in macrophages[J]. Science and Technology of Food Industry, 2020, 41(20):33-40. (in Chinese)

[33]
KNIGHT T, LUEDTKE D, EDWARDS H, et al. A delicate balance-the BCL-2 family and its role in apoptosis,oncogenesis,and cancer therapeutics[J]. Biochemical Pharmacology, 2019, 162:250-261.

DOI

[34]
WU B Y, CUI H M, PENG X, et al. Dietary Nickel chloride induces oxidative stress,apoptosis and alters Bax/Bcl-2 and Caspase-3 mRNA expression in the cecal tonsil of broilers[J]. Food and Chemical Toxicology, 2014, 63:18-29.

DOI

[35]
金晓露. 白藜芦醇抵御奶牛乳腺上皮细胞氧化应激的作用机制研究[D]. 博士学位论文. 杭州: 浙江大学, 2016.

JIN X L. Mechanisms underlying the cytoprotective effects of resveratrol against oxidative stress in bovine mammary epithelial cells[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2016. (in Chinese)

[36]
SALAKOU S, KARDAMAKIS D, TSAMANDAS A C, et al. Increased Bax/Bcl-2 ratio up-regulates Caspase-3 and increases apoptosis in the thymus of patients with myasthenia gravis[J]. In Vivo, 2007, 21(1):123-132.

文章导航

/