研究论文

芦丁对湖羊乳腺氧化应激相关指标及核因子E2相关因子2信号通路基因表达的影响

  • 丁红研 , 1 ,
  • 李玉 1 ,
  • 赵畅 1 ,
  • 冯士彬 1 ,
  • 王希春 1 ,
  • 汤继顺 2 ,
  • 吴金节 , 1, *
展开
  • 1 安徽农业大学动物科技学院,合肥 230036
  • 2 安徽省农业科学院畜牧兽医研究所,合肥 230031
*吴金节,教授,博士生导师,E-mail:

丁红研(1988—),女,河北任丘人,博士研究生,从事反刍动物营养与代谢病研究。E-mail:

Copy editor: 田艳明

收稿日期: 2022-08-04

  网络出版日期: 2023-04-12

基金资助

安徽省自然科学基金优青项目(2208085Y13)

动物营养调控与健康安徽省重点实验室开放课题(APKLANRH202003)

安徽省重点研究与开发计划面上攻关项目(202004a06020043)

Effects of Rutin on Oxidative Stress-Related Indices and Nuclear Factor E2 Related Factor 2 Signaling Pathway Related Gene Expression in Mammary Gland of Hu Sheep

  • DING Hongyan , 1 ,
  • LI Yu 1 ,
  • ZHAO Chang 1 ,
  • FENG Shibin 1 ,
  • WANG Xichun 1 ,
  • TANG Jishun 2 ,
  • WU Jinjie , 1, *
Expand
  • 1 College of Animal Science and Technology, Anhui Agricultural University, Hefei 230036, China
  • 2 Institute of Animal Husbandry and Veterinary Medicine, Anhui Academy of Agricultural Sciences, Hefei 230031, China
*professor, E-mail:

Received date: 2022-08-04

  Online published: 2023-04-12

摘要

本试验旨在研究饲粮中添加芦丁对产后湖羊乳腺氧化应激相关指标及核因子E2相关因子2(NRF2,基因为NFE2L2)信号通路基因表达的影响。选取体重相近且分娩日期相近的湖羊30只,随机分为3组,每组10只。对照组饲喂基础饲粮,试验组分别饲喂在基础饲粮中添加50和100 mg/kg BW芦丁的饲粮。预试期7 d,正试期56 d。结果表明:1)与对照组相比,饲粮中添加50 mg/kg BW芦丁能够减少湖羊乳腺腺泡内炎性细胞数量,100 mg/kg芦丁组湖羊乳腺腺泡内未见炎性细胞。2)与对照组相比,饲粮中添加100 mg/kg BW芦丁显著或极显著提高乳腺组织中过氧化氢酶(CAT)(P<0.01)和谷胱甘肽过氧化物酶(GSH-Px)(P<0.05)活性以及总抗氧化能力(T-AOC)(P<0.05),饲粮中添加50和100 mg/kg BW芦丁极显著降低过乳腺组织中过氧化氢(H2O2)含量(P<0.01)。3)与对照组相比,饲粮中添加100 mg/kg BW芦丁极显著提高乳腺组织细胞内NRF2的蛋白表达水平(P<0.01),显著提高乳腺组织中NFE2L2 mRNA相对表达量(P<0.05),显著降低乳腺组织中Kelch样ECH关联蛋白1(KEAP1)mRNA相对表达量(P<0.05)。4)与对照组相比,饲粮中添加50 mg/kg BW芦丁显著提高乳腺组织中谷氨酸-半胱氨酸连接酶修饰亚基(GCLM)mRNA相对表达量(P<0.05);饲粮中添加100 mg/kg BW芦丁显著或极显著提高乳腺组织中GCLM(P<0.01)、GSH-Px(P<0.05)、硫氧还蛋白(TXN)(P<0.05)、铁蛋白重链1(FTH1)(P<0.01)、转醛醇酶1(TALDO1)(P<0.05)、苹果酸酶1(ME1)(P<0.05)和血红素氧合酶1(HMOX1)mRNA相对表达量,显著提高乳腺组织中B淋巴细胞瘤2(BCL2)mRNA相对表达量(P<0.05)。由此可见,饲粮中添加50和100 mg/kg BW芦丁能够减少湖羊乳腺腺泡内炎性细胞数量,并发挥抗氧化应激作用,通过调节NRF2信号通路的基因表达水平,改善产后湖羊乳腺的健康状态。

本文引用格式

丁红研 , 李玉 , 赵畅 , 冯士彬 , 王希春 , 汤继顺 , 吴金节 . 芦丁对湖羊乳腺氧化应激相关指标及核因子E2相关因子2信号通路基因表达的影响[J]. 动物营养学报, 2023 , 35(4) : 2629 -2640 . DOI: 10.12418/CJAN2023.245

Abstract

The purpose of the present study was to investigate the effects of rutin on oxidative stress-related indices and nuclear factor E2 related factor 2 (NRF2, gene named NFE2L2) signaling pathway gene expression in mammary gland of postpartum Hu sheep. Thirty Hu sheep with similar body weight and similar birth date were randomly divided into 3 groups with 10 sheep in each group. Sheep in the control group were fed a basal diet, and those in the experimental groups were fed the basal diet supplemented with 50 and 100 mg/kg BW rutin, respectively. The pre-trial period lasted for 7 days and the experimental period lasted for 56 days. The results showed as follows: 1) compared with the control group, dietary 50 mg/kg BW rutin could reduce the number of inflammatory cells in mammary gland acinus of Hu sheep, and no inflammatory cells were found in mammary gland acinus of Hu sheep in 100 mg/kg rutin group. 2) Compared with the control group, dietary 100 mg/kg BW rutin significantly or extremely significantly increased the activities of catalase (CAT) (P<0.01) and glutathione peroxidase (GSH-Px) (P<0.05) and total antioxidant capacity (T-AOC) (P<0.05) in mammary gland, dietary 50 and 100 mg/kg BW rutin extremely significantly decreased the hydrogen peroxide (H2O2) content in mammary gland (P<0.01). 3) Compared with the control group, dietary 100 mg/kg BW rutin extremely significantly increased the NRF2 protein expression level in mammary gland cells (P<0.01), significantly increased the NFE2L2 mRNA relative expression level in mammary gland (P<0.05), and significantly decreased the Kelch-like ECH associated protein 1 (KEAP1) mRNA relative expression level of in mammary gland (P<0.05). 4) Compared with the control group, dietary 50 mg/kg BW rutin significantly increased the glutamate-cysteine ligase modified subunit (GCLM) mRNA relative expression level in mammary gland (P<0.05); dietary 100 mg/kg BW rutin significantly or extremely significantly increased the mRNA relative expression levels of GCLM (P<0.01), GSH-Px (P<0.05), thioredoxin (TXN) (P<0.05), ferritin heavy chain 1 (FTH1) (P<0.01), transaldolase 1 (TALDOL1) (P<0.05), malic enzyme 1 (ME1) (P<0.05) and heme oxygenase 1 (HMOX1) in mammary gland, and significantly increased the B lymphocytoma-2 (BCL2) mRNA relative expression level in mammary gland (P<0.05). In conclusion, dietary 50 and 100 mg/kg BW rutin can reduce the number of inflammatory cells in mammary gland acinus of Hu sheep, play an antioxidant stress role, and improve the health status of postpartum mammary gland of Hu sheep by regulating the gene expression levels of NRF2 signaling pathway.

围产期是反刍动物最关键的时期,此阶段反刍动物会经历包括能量负平衡的发生、肝功能紊乱、全身性的炎症反应以及氧化应激等在内的一系列巨大的生理变化[1-2]。其中,氧化应激能够引起细胞DNA、蛋白质以及脂质分子的氧化,从而导致组织损伤[3]。近十年的研究表明,反刍动物围产期普遍经历不同程度的氧化应激,并且氧化应激与围产期疾病的发生发展存在着密切的关系[4-6]。因此,做好反刍动物围产期的抗氧化管理至关重要。
芦丁(rutin)又称芸香苷、维生素P等,是广泛存在于植物根、茎叶、花、果实和种子中的一种黄酮类化合物,具有广泛的生物学活性,包括抗炎、抗氧化、抗肿瘤、保肝护肾及保护神经等[7-8]。芦丁大部分生物活性主要归因于其有效的抗氧化特性,尤其是作为自由基清除剂的能力[9]。研究表明,芦丁可以通过降低细胞内活性氧(ROS)等自由基水平,降低细胞内炎症以及凋亡相关因子的表达,从而起到抗炎和组织保护等作用[10-11]。也有研究发现,饲粮中添加芦丁能够改善反刍动物能量代谢并提高其生产性能[12-13]。对奶牛乳腺上皮细胞的研究发现,芦丁能够提高细胞的抗氧化能力,抑制细胞的凋亡[14]。本实验室的前期研究发现,芦丁能够降低湖羊血液内氧化应激状态,改善乳腺组织内炎症及凋亡情况[15]。综上所述,芦丁对乳腺组织具有潜在的生物学影响。
核因子E2相关因子2(NRF2,基因为NFE2L2)是属于cap-n-collar(CNC)调节蛋白家族的一种转录因子,被认为是细胞防御和抗氧化的关键调节因子[16]。在体外培养的乳腺上皮细胞中,几种植物提取的抗氧化剂可以通过提高NRF2的表达,触发抗氧化基因的转录,从而影响细胞的氧化应激状态[17-18]。补充蛋氨酸能够通过提高乳腺组织中NFE2L2以及其下游抗氧化相关靶基因mRNA的表达,从而影响乳腺组织的氧化应激状态[19]。综上所述,无论在体内还是体外,NRF2均参与了乳腺的抗氧化反应的调控。由此可见,NRF2作为一种转录因子,在调节乳腺细胞抗氧化基因mRNA的表达中起着关键作用。基于以上结果,我们提出假设,芦丁除了有利于全身氧化应激状态和生产性能外,也能够通路调节NRF2以及下游抗氧化基因mRNA的表达,调节湖羊乳腺的氧化应激状态。因此,本试验开展芦丁对产后湖羊乳腺组织中氧化应激相关指标和NRF2通路相关基因的影响,为芦丁作为一种绿色抗氧化剂在反刍动物生产中应用提供一定的理论依据。

1 材料与方法

1.1 试验材料

试验所用芦丁购自于青岛某制药有限公司,纯度≥95%。

1.2 试验设计及饲养管理

试验选择24月龄位于围产期的经产母羊30只,体重为(62.90±2.80) kg,随机分为3组,每组10只,每组分2栏饲养。对照组饲喂基础饲粮,试验组分别饲喂在基础饲粮中添加50和100 mg/kg BW芦丁的饲粮。精料每日每只母羊300 g,粗料不限,饲粮营养水平见表1。将芦丁与精料混匀后,于晨饲先喂,然后再喂粗料。饲养试验于2020年5—7月在安徽省马鞍山市金农牧业有限公司湖羊养殖场进行,预试期7 d,正试期56 d,为产前28 d至产后28 d。每天饲喂2次,分为06:00和15:00,自由采食,自由饮水。其他饲养管理按照养殖场规定进行。
表1 饲粮营养水平(风干基础)

Table 1 Nutrient levels of diets (air-dry basis) %

项目Items 精料Concentrate 粗料Roughage
粗蛋白质Crude protein 14.00 6.86
钙Calcium 0.64 1.14
磷Phosphorus 0.38 0.18
粗脂肪Crude fat 1.4 0.6
干物质Dry matter 88.2 88.6
酸性洗涤纤维Acid detergent fiber 3.0 43.9
中性洗涤纤维Neutral detergent fiber 67.0 60.9

1.3 样品采集与指标检测

1.3.1 乳腺组织采集

参考尹清艳[5]的方法于产后28 d晨饲前,每栏随机选取2~3只母羊屠宰,采集乳腺组织,每组总共屠宰5只母羊。将一部分乳腺组织固定于4%多聚甲醛溶液中,用于后续乳腺组织形态观察和免疫组化观察;另一部分立即放置于液氮中冻存,之后转移至-80 ℃冰箱冻存,待测乳腺组织相关指标。

1.3.2 乳腺组织病理学观察

按照石蜡切片的制作流程对固定好的乳腺组织进行石蜡切片制作,对制作好的切片进行苏木精-伊红(HE)染色,中性树脂封片,然后在显微镜下观察各组乳腺组织的病理学变化。

1.3.3 乳腺组织中氧化应激相关指标的检测

参考尹清艳[5]的方法从-80 ℃冰箱中取出乳腺组织,于干冰上取100 mg左右乳腺组织样品,采用酶联免疫吸附试验(ELISA)法检测乳腺组织总抗氧化能力(T-AOC)和过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)、超氧化物歧化酶(SOD)活性以及过氧化氢(H2O2)、丙二醛(MDA)含量等。

1.3.4 免疫组化

使用防脱载玻片制作石蜡切片,对制作好的石蜡切片进行免疫组化染色,NRF2抗体孵育完成后进行常规封片,晾干后在高倍显微镜下观察,蛋白的阳性反应呈棕黄色圆点状,随机选取视野拍照,使用ImageJ软件计算各组阳性表达的光密度值并进行分析。

1.3.5 NRF2信号通路相关基因表达的检测

参考Han等[19]的方法从-80 ℃冰箱中取出乳腺组织,使用TRIzol提取RNA,检测提取的RNA浓度后,进行反转录,具体步骤参照PrimeScriptTM RT reagent Kit with gDNA Eraser(TaKaRa)试剂盒说明书进行;以反转录得到的cDNA为模板,以β-肌动蛋白(β-actin)为内参采用实时荧光定量PCR(qRT-PCR)方法检测乳腺组织中NFE2L2以及其他氧化应激相关基因的表达,具体操作由安徽欣乐生物技术有限公司完成。采用Primer 5软件,根据NCBI提供的绵羊源序列设计引物,具体基因及引物序列见表2。qRT-PCR反应体系如表3所示,反应条件为:95 ℃预变性1 min后,进行PCR反应,95 ℃、20 s,60 ℃、1 min,40个循环。使用2-△△Ct法计算目的基因的mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
B淋巴细胞瘤2 BCL2 F:ATTTCTCCTGGCTGTCTCTG
R:TCACTTATGGCCCAGATAGG
89
谷胱甘肽还原酶GSR F:CGGACTCTAATCGCGAGC
R:TAGTCGTAAGAGATCTCGGC
176
谷氨酸-半胱氨酸连接酶催化亚基GCLC F:ATTTGCAAAGGTGGCAACG
R:CGTTGATGATGGTGTCGATG
109
谷胱甘肽过氧化物酶GSH-Px F:TGGATCTCATACCATGTGCG
R:GCGATGCTACGTTCTCAATG
164
谷氨酸-半胱氨酸连接酶修饰亚基GCLM F:CGGTTACGAAGCACTTTCTC
R:TAGAGTGGACTCCCAACTGA
84
苹果酸酶1 ME1 F:GAGGTCATAGCTCAGCAAGT
R:ACATCTGAGAGCGGACAAAT
187
转醛醇酶1 TALDO1 F:CACGGACAAGAAGTCCTACG
R:GAGATGGTGAGGAAGTCGCA
168
硫氧还蛋白TXN F:CCGCCCACCGTTACTATAAA
R:TACGAGTTTCTCTCCTGCAC
189
硫氧还蛋白还原酶TXNRD F:CGCGCAGATGCTATACTGA
R:TTCTCCGTTTCACAAGGGTT
86
铁螯合酶FECH F:CGTTTACCAGCGATCACATC
R:GTCCACACTCATTGGCTAGA
78
血红素氧合酶1 HMOX1 F:CGAGAAGGTTTTAAGCTGGTG
R:TCCTTGTTGCGTTCGATCT
80
基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
铁蛋白重链1 FTH1 F:CAGATCAACCTGGAGCTGTA
R:AGCTTCATCAGTCTCTCAGC
149
铁结合核蛋白PIR F:CGTGACCGTTGCTGTTATTT
R:TGCATCATCGGGTCCTTTAG
142
醌氧化还原酶1 NQO1 F:TTCAATCCCGTCATCTCCAG
R:GTCTCGGCAGGATACTGAAA
77
核因子E2相关因子2 NFE2L2 F:CCACATTCCCAAAGCAGATG
R:GGGAACAGGTGATTGAAACG
118
Kelch样ECH相关蛋白1 KEAP1 F:TTTATTGAGCGCTAGCATTCTC
R:TGTTAATAATACAGGCACCTACC
70
泛素连接酶3 CUL3 F:CGATTCCCAGTTATCTCGCT
R:GCAAGTGGCAGAATAAAGCA
123
核转录因子-kappa B1 NF-κB1 F:CAGATGGCCCATACCTTCAA
R:TTTTGCAGGTCCCACATAGT
167
丝裂原活化蛋白激酶12 MAPK12 F:GATTTGGGGATGGGGGTAGA
R:GGATCTCGTGTTTCCTCCTTC
92
丝裂原活化蛋白激酶14 MAPK14 F:GGGCTGAGCTTTTGAAGAAAAT
R:CAAAGTTCATCTTCGGCATCT
84
丝裂原活化蛋白激酶8 MAPK8 F:CTAGGCATGGGCTACAAAGA
R:CCACCTTTGATCATTTCTCCC
74
视黄醇类X受体α RXRA F:GACCAGTTACCAGCGTTTTC
R:GCTAAAGCTGTTTGCTCCAA
186
β-肌动蛋白β-actin F:TCCTTCCTGGGCATGGAATC
R:CGTAAAGGTCCTTGCGGATG
91
表3 qRT-PCR反应体系

Table 3 Reaction system of qRT-PCR μL

体系System 体积Volume
2×SYBR Green mixture 5
上游引物Forward primer (10 μmol/L) 1
下游引物Reverse primer (10 μmol/L) 1
cDNA 1
RNase free water 2
总计Total 10

1.4 数据统计与分析

试验数据采用Excel 2019进行初步整理,采用SPSS 19.0软件进行单因素方差分析(one-way ANOVA),采用LSD法进行多重比较,结果以“平均值±标准误”表示,P<0.01表示差异极显著,P<0.05表示差异显著。

2 结果与分析

2.1 芦丁对湖羊乳腺组织学变化的影响

图1所示,各组湖羊乳腺组织均可观察到完整的细胞形态和结构,细胞核清晰,腺泡完整。对照组乳腺可见少量炎性细胞浸润,但无明显病理特征;与对照组相比,50 mg/kg芦丁组腺泡内炎性细胞明显减少,100 mg/kg芦丁组腺泡内未见炎性细胞,且细胞凸起形成的乳头较多,说明乳腺上皮细胞较多。
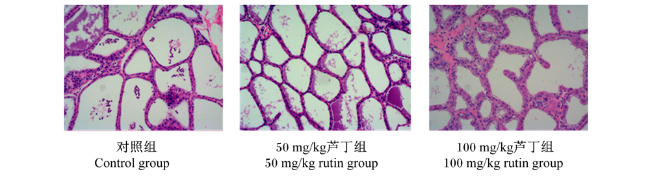
图1 芦丁对湖羊乳腺组织病理变化的影响

Fig.1 Effects of rutin on histopathological changes in mammary gland of Hu sheep (200×)

2.2 芦丁对湖羊乳腺组织中氧化应激相关指标的影响

图2可知,与对照组相比,饲粮中添加50 mg/kg BW芦丁能够极显著降低湖羊乳腺组织中H2O2的含量(P<0.01),对乳腺组织中其他氧化应激指标未见显著影响(P>0.05);饲粮中添加100 mg/kg BW芦丁能够极显著降低湖羊乳腺组织中H2O2的含量(P<0.01),显著或极显著提高乳腺组织中CAT(P<0.01)和GSH-Px(P<0.05)的活性以及T-AOC(P<0.05)。
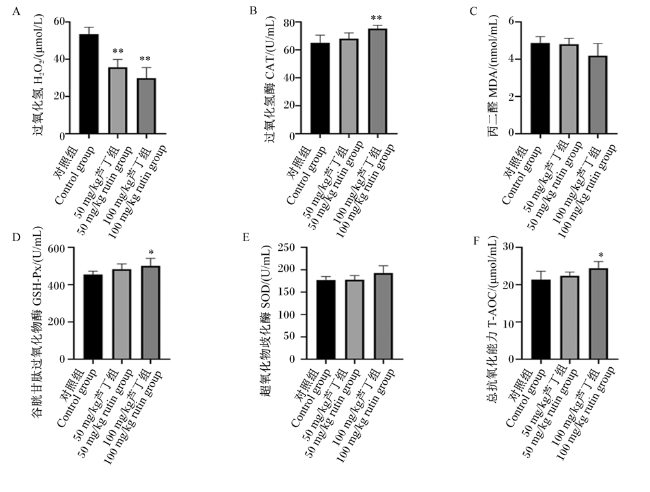
图2 芦丁对湖羊乳腺组织中氧化应激相关指标的影响

与对照组相比,*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。下图同。

Fig.2 Effects of rutin on oxidative stress-related indices in mammary gland of Hu sheep

Compared with the control group, * mean significant difference (P<0.05), and ** mean extremely significant difference (P<0.01). The same as below.

2.3 芦丁对湖羊乳腺组织中NRF2表达的影响

图3可知,与对照组相比,饲粮中添加100 mg/kg BW芦丁能够极显著提高湖羊乳腺组织细胞内NRF2的蛋白表达水平(P<0.01),且NRF2多集中于细胞核内;饲粮中添加100 mg/kg BW芦丁能够显著提高乳腺组织中NFE2L2 mRNA相对表达量(P<0.05),显著降低乳腺组织中Kelch样ECH相关蛋白1(KEAP1)mRNA相对表达量(P<0.05),对乳腺组织中泛素连接酶3(CUL3)mRNA相对表达量无显著影响(P>0.05)。
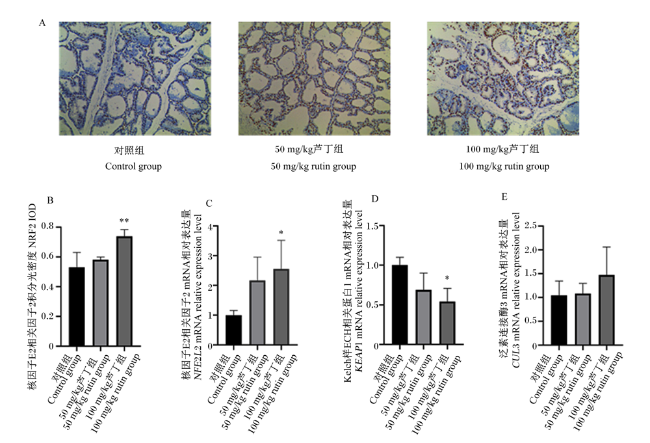
图3 芦丁对湖羊乳腺组织中NRF2表达的影响

A图放大比例为100×。

Fig.3 Effects of rutin on NRF2 expression in mammary gland of Hu sheep

The scale of Fig.A was 100×.

2.4 芦丁对湖羊乳腺组织中NRF2信号通路相关基因表达的影响

图4可知,与对照组相比,饲粮中添加50 mg/kg BW芦丁显著提高湖羊乳腺组织中谷氨酸-半胱氨酸连接酶修饰亚基(GCLM)mRNA相对表达量(P<0.05),对其他NRF2信号通路相关基因的mRNA相对表达量未见显著影响(P>0.05);饲粮中添加100 mg/kg BW芦丁显著或极显著提高乳腺组织中GCLM(P<0.01)、GSH-Px(P<0.05)、硫氧还蛋白(TXN)(P<0.05)、铁蛋白重链1(FTH1)(P<0.01)、转醛醇酶1(TALDO1)(P<0.05)、苹果酸酶1(ME1)(P<0.05)和血红素氧合酶1(HMOX1)mRNA相对表达量,对谷氨酸-半胱氨酸连接酶催化亚基(GCLC)、谷胱甘肽还原酶(GSR)、铁螯合酶(FECH)和醌氧化还原酶1(NQO1)mRNA相对表达量未见显著影响(P>0.05)。
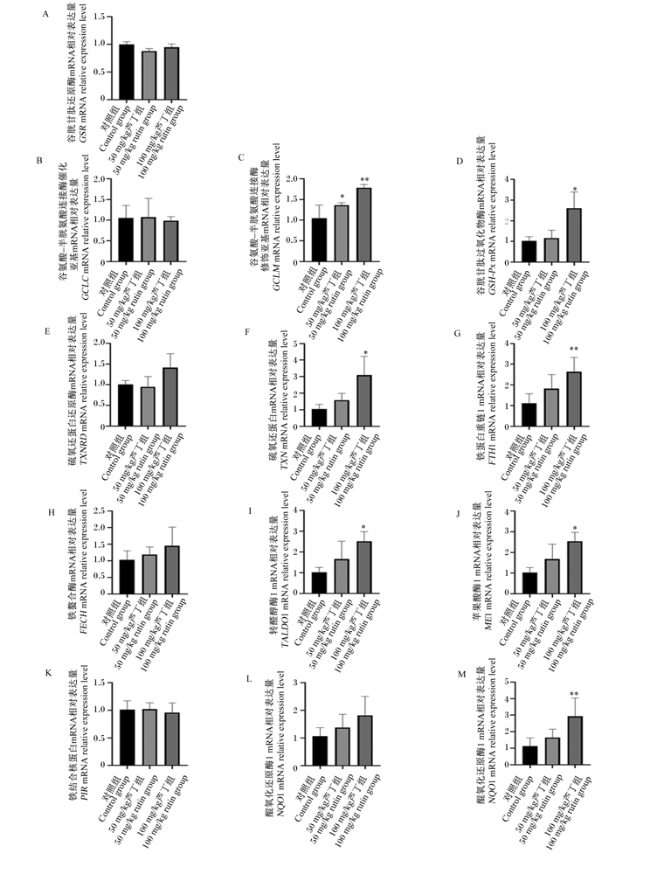
图4 芦丁对湖羊乳腺组织NRF2信号通路相关基因表达的影响

Fig.4 Effects of rutin on expression of genes related to NRF2 signaling pathway in mammary gland of Hu sheep

2.5 芦丁对湖羊乳腺组织中其他通路蛋白基因表达的影响

图5可知,与对照组相比,试验组湖羊乳腺组织中核转录因子-kappa B1(NF-κB1)、丝裂原活化蛋白激酶8(MAPK8)、丝裂原活化蛋白激酶12(MAPK12)、丝裂原活化蛋白激酶14(MAPK14)和视黄醇类X受体α(RXRA)mRNA相对表达量虽有变化趋势,但差异均不显著(P>0.05);饲粮中添加100 mg/kg BW芦丁显著提高乳腺组织中B淋巴细胞瘤2(BCL2)mRNA相对表达量(P<0.05)。
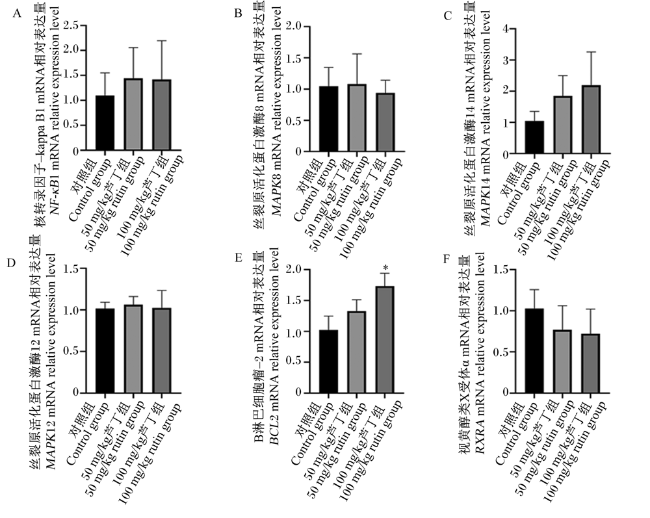
图5 芦丁对湖羊乳腺组织中其他通路蛋白基因表达的影响

Fig.5 Effects of rutin on gene expression of other pathway proteins in mammary gland of Hu sheep

3 讨论

围产期是反刍母畜繁殖周期内内分泌和代谢变化最为显著的时期,这一阶段能量需求增加,代谢增强,极易产生能量负平衡现象。能量负平衡引起过量的脂肪发生动员,这可能会产生大量的ROS[2]。过量的ROS使机体的正常氧化还原反应失衡,损害生理进程,如导致细胞损伤和功能障碍等,引起围产期母畜发生氧化应激[4]。乳腺作为哺乳动物泌乳的组织器官,其良好的发育以及健康的状态直接影响着泌乳性能和乳汁成分[20]。氧化应激是影响哺乳动物乳腺健康的主要因素之一[21]。对小鼠的研究表明,饲粮中添加芦丁能够防止脂多糖(lipopolysaccharide,LPS)诱导的乳房炎的发生[22]。因此,本试验中,我们以围产期湖羊的乳腺组织为研究对象,以芦丁为外源抗氧化补充剂,研究饲粮中添加芦丁对围产期湖羊乳腺氧化应激相关指标及NRF2信号通路基因表达的影响。
SOD、CAT和GSH-Px等抗氧化酶的活性是评定机体抗氧化能力的重要指标[23-24]。Yang等[11]研究发现,芦丁能够通过调节沉默信息调节因子2相关酶1(SIRT1)通路提高SOD、GSH-Px、CAT活性,并降低MDA含量,从而减轻心肌损伤。芦丁单体形式的槲皮素能够显著降低SD小鼠大脑内的ROS含量以及SOD活性,显著降低锰金属诱导的细胞内ROS、MDA含量,显著提高SOD、CAT活性以及谷胱甘肽(GSH)含量[25]。李敏[26]研究表明,芦丁能够提高心肌成纤维细胞SOD活性,降低MDA含量。在本试验中,饲粮中添加芦丁显著提高了湖羊乳腺组织中CAT、GSH-Px活性以及T-AOC,虽然SOD活性未见显著变化,但也表现出一定的升高趋势,MDA含量有一定程度的降低。这表明饲粮中添加芦丁能够提高湖羊乳腺组织的抗氧化能力,降低氧化应激状态。
NRF2是细胞应对氧化应激的防御机制的关键调节因子,能协调许多抗氧化基因的表达,且NRF2的活性受到KEAP1/CUL3泛素连接酶复合物的调节[27]。对小鼠的研究发现,敲除KEAP1能够增加NRF2的积累,对人类细胞的研究[28-29]也出现类似的结果。反刍动物ROS增加,刺激KEAP1释放NRF2,导致核易位和抗氧化靶基因中的抗氧化反应元件的激活[30]。此外,类胡萝卜素和油橄榄提取物等抗氧化剂也能刺激NRF2通路的激活[31-32]。本研究中,饲粮中添加100 mg/kg BW芦丁能够显著降低湖羊乳腺组织中KEAP1 mRNA相对表达量,显著提高NFE2L2 mRNA相对表达量以及细胞核内NRF2蛋白的表达,说明饲喂芦丁能够降低KEAP1的表达,提高湖羊乳腺组织中NRF2的活性。围产期湖羊乳腺组织代谢旺盛,ROS增加,KEAP1释放NRF2,增加NRF2活化,饲喂芦丁一定程度上增强了这个反应,使湖羊乳腺组织抗氧化能力进一步增强。
GSH和TXN系统是细胞内清除ROS的主要内源性抗氧化系统[33]。NRF2可以调控GSH和TXN系统关键因子的表达[18]。本试验通过qRT-PCR检测乳腺组织GSH系统关键因子GCLCGCLMGSRME1基因的表达,结果发现,饲粮中添加100 mg/kg BW芦丁能够显著提高围产期湖羊乳腺组织中GCLMGSH-Px mRNA相对表达量,说明芦丁能够促进GSH的生成,提高乳腺组织的抗氧化能力。此外,饲粮中添加100 mg/kg BW芦丁还能显著提高湖羊乳腺组织中TXN mRNA相对表达量,有提高TXNRD mRNA相对表达量的趋势,但不显著。这些结果表明芦丁能够一定程度提高湖羊乳腺组织的TXN系统的抗氧化能力。TXNTXNRD的表达受NRF2的调控[34-35]。因此,本研究表明,芦丁提高湖羊乳腺组织的GSH和TXN系统的抗氧化能力可能是通过提高NRF2的mRNA表达以及核含量实现的。
胞质烟酰胺腺嘌呤二核苷酸磷酸(NADP)依赖的ME1和TALDO1均可参与还原型烟酰胺腺嘌呤二核苷酸磷酸(NADPH)的生成,也能够被NRF2调控[36-37]。有研究表明,敲除TALDO1的小鼠肝细胞表现出氧化应激和线粒体功能障碍[38]。本试验中,饲粮中添加100 mg/kg BW芦丁能够显著提高湖羊乳腺组织中ME1和TALDO1 mRNA相对表达量。说明芦丁可能通过提高NRF2的核表达,增加NADPH的生成,从而增强湖羊乳腺组织的抗氧化能力。
HMOX1是由NRF2调控的另一个重要细胞保护酶,它可以催化血红素分子的降解[39]。血红素降解能够通过游离二价铁离子(Fe2+)触发Fenton反应[40]。铁蛋白复合物可以将Fe2+氧化为三价铁离子(Fe3+),并将其储存在其自身的结构中,从而使其无法用于Fenton反应[41-42]。本研究中,饲粮中添加100 mg/kg BW芦丁能够显著提高湖羊乳腺组织中HMOX1和铁蛋白复合物亚基FTH1 mRNA相对表达量,有提高FECH mRNA相对表达量的趋势,但与对照组相比差异不显著,这些结果表明芦丁能够在增加HMOX1的同时,降低Fenton反应,增强乳腺组织的抗氧化能力。
NRF2除了能够被KEAP1调节外,还能够与其他通路蛋白相互作用调节机体的氧化还原状态,如丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)和核因子-κB(NF-κB)[18]。对小鼠肝脏的研究发现,0.5%槲皮素(芦丁单体形式)能够增加MAPK12和MAPK14的磷酸化,但对其mRNA表达无显著影响[43]。本试验中,饲粮中添加芦丁也未显著影响湖羊乳腺组织中MAPK8、MAPK12和MAPK14 mRNA相对表达量,但饲粮中添加100 mg/kg BW芦丁能够显著提高其下游抗凋亡关键因子BCL2 mRNA相对表达量。这些结果说明,芦丁对湖羊乳腺组织中MAPK的影响可能集中在蛋白水平,具体需进一步研究。
NFE2L2启动子包含NF-κB的结合位点,因此它可以被炎症刺激诱导活化[44]。体外研究中,NFE2L2的转录确实可以被LPS处理激活[45-46]。NRF2信号通路的激活可抑制NF-κB的激活和炎症反应[47]。许多中药提取物通过激活NRF2信号通路保护细胞抵御LPS诱导的损伤[45-46]。本实验室之前的研究中发现,灌喂芦丁能够通过抑制NF-κB通路的激活,缓解LPS诱导的小鼠乳房炎[22]。本试验中,饲粮中添加芦丁并未对湖羊乳腺组织中NF-κB1 mRNA相对表达量产生显著影响。但在另一项研究中发现,芦丁降低了NF-κB p65蛋白的磷酸化水平[15]。因此,我们推断芦丁对NF-κB的影响可能也在蛋白水平。

4 结论

饲粮中添加芦丁可使NRF2活化,降低负调控因子KEAP1中的表达,提高抗氧化蛋白HMOX1以及各种抗氧化相关酶mRNA表达,缓解围产期湖羊乳腺组织的氧化应激。
[1]
ZAMUNER F, DIGIACOMO K, CAMERON A W N, et al. Endocrine and metabolic status of commercial dairy goats during the transition period[J]. Journal of Dairy Science, 2020, 103(6):5616-5628.

DOI PMID

[2]
SORDILLO L M, MAVANGIRA V. The nexus between nutrient metabolism,oxidative stress and inflammation in transition cows[J]. Animal Production Science, 2014, 54(9):1204-1214.

DOI

[3]
HALLIWELL B, GUTTERIDGE J M C. Free radicals in biology and medicine[M]. New York: oxford university press, 2007.

[4]
ABUELO A, HERNÁNDEZ J, BENEDITO J L, et al. The importance of the oxidative status of dairy cattle in the periparturient period:revisiting antioxidant supplementation[J]. Journal of Animal Physiology and Animal Nutrition, 2015, 99(6):1003-1016.

DOI

[5]
尹清艳. 烟酰胺对围产期奶山羊氧化应激状态的影响及初步机制[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2019.

YIN Q Y. Nicotinamide regulates oxidative stress in dairy goats during the transition period[D]. Master's Thesis. Yangling: Northwest A&F University, 2019. (in Chinese)

[6]
朱伦琴, 莘海亮, 杨艺, 等. 日粮DCAD水平对围产期山羊胃肠道VDR表达水平及血液抗氧化应激能力的影响[C]// 第七届中国饲料营养学术研讨会论文集. 郑州: 中国畜牧兽医学会动物营养学分会, 2014:463.

ZHU L Q, SHEN H L, YANG Y, et al. Effects of dietary DCAD levels on the expression of VDR in gastrointestinal tract and the ability of antioxidative in blood in perinatal goats[C]. Proceedings of the 7th China feed nutrition Symposium. Zhengzhou: Animal Nutrition Branch Chinese Association of Animal Science and Veterinary Med, 2014.. (in Chinese)

[7]
占今舜, 钟小军, 杨群, 等. 芦丁的生物活性功能及其在反刍动物生产中的应用[J]. 动物营养学报, 2019, 31(7):2952-2957.

ZHAN J S, ZHONG X J, YANG Q, et al. Bio-active functions of rutin and its application in ruminant production[J]. Chinese Journal of Animal Nutrition, 2019, 31(7):2952-2957. (in Chinese)

[8]
GHORBANI A. Mechanisms of antidiabetic effects of flavonoid rutin[J]. Biomedicine & Pharmacotherapy, 2017, 96:305-312.

DOI

[9]
CHUA L S. A review on plant-based rutin extraction methods and its pharmacological activities[J]. Journal of Ethnopharmacology, 2013, 150(3):805-817.

DOI PMID

[10]
SUN J H, WANG H, LIU B, et al. Rutin attenuates H2O2-induced oxidation damage and apoptosis in Leydig cells by activating PI3K/Akt signal pathways[J]. Biomedicine & Pharmacotherapy, 2017, 88:500-506.

DOI

[11]
YANG H, WANG C, ZHANG L Y, et al. Rutin alleviates hypoxia/reoxygenation-induced injury in myocardial cells by up-regulating SIRT1 expression[J]. Chemico-Biological Interactions, 2019, 297:44-49.

DOI

[12]
STOLDT A K, DERNO M, DAS G, et al. Effects of rutin and buckwheat seeds on energy metabolism and methane production in dairy cows[J]. Journal of Dairy Science, 2016, 99(3):2161-2168.

DOI

[13]
郭旭东. 芦丁对奶牛泌乳性能、瘤胃消化代谢和对大鼠乳腺发育的影响[D]. 博士学位论文. 北京: 中国农业科学院, 2011.

GUO X D. Studies of rutin's role on lactation performance,the rumen digestion and metabolism in dairy cows,and the development of mammary glands in rats[D].Ph.D. Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2011. (in Chinese)

[14]
罗永光. 芦丁对体外培养奶牛乳腺上皮细胞生长的影响[J]. 中国畜牧杂志, 2019, 55(9):96-99.

LUO Y G. ffects of rutin on the bovine mammary gland cells cultured in vitro[J]. Chinese Journal of Animal Science, 2019, 55(9):96-99. (in Chinese)

[15]
DING H Y, LI Y, ZHAO C, et al. Rutin supplementation reduces oxidative stress,inflammation and apoptosis of mammary gland in sheep during the transition period[J]. Frontiers in Veterinary Science, 2022, 9:907299.

DOI

[16]
GORRINI C, HARRIS I S, MAK T W. Modulation of oxidative stress as an anticancer strategy[J]. Nature Reviews Drug Discovery, 2013, 12(12):931-947.

DOI PMID

[17]
SUN X D, JIA H D, XU Q S, et al. Lycopene alleviates H2O2-induced oxidative stress, inflammation and apoptosis in bovine mammary epithelial cells via the NFE2L2 signaling pathway[J]. Food & Function, 2019, 10(10):6276-6285.

[18]
MA Y F, ZHAO L, COLEMAN D N, et al. Tea polyphenols protect bovine mammary epithelial cells from hydrogen peroxide-induced oxidative damage in vitro by activating NFE2L2/HMOX1 pathways[J]. Journal of Dairy Science, 2019, 102(2):1658-1670.

DOI

[19]
HAN L, BATISTEL F, MA Y, et al. Methionine supply alters mammary gland antioxidant gene networks via phosphorylation of nuclear factor erythroid 2-like 2 (NFE2L2) protein in dairy cows during the periparturient period[J]. Journal of Dairy Science, 2018, 101(9):8505-8512.

DOI PMID

[20]
恒景会, 田敏, 管武太, 等. 氧化应激对母畜乳腺功能的影响及其营养调控策略[J]. 动物营养学报, 2020, 32(12):5587-5595.

DOI

HENG J H, TIAN M, GUAN W T, et al. Effects of oxidative stress on mammary gland function of female animals and its nutritional regulation strategy[J]. Chinese Journal of Animal Nutrition, 2020, 32(12):5587-5595. (in Chinese)

[21]
CLARK S, MORA GARCÍA M B. A 100-year review:advances in goat milk research[J]. Journal of Dairy Science, 2017, 100(12):10026-10044.

DOI

[22]
SU S Y, LI X Y, LI S T, et al. Rutin protects against lipopolysaccharide-induced mastitis by inhibiting the activation of the NF-κB signaling pathway and attenuating endoplasmic reticulum stress[J]. Inflammopharmacology, 2019, 27(1):77-88.

DOI PMID

[23]
BERNABUCCI U, RONCHI B, LACETERA N, et al. Influence of body condition score on relationships between metabolic status and oxidative stress in periparturient dairy cows[J]. Journal of Dairy Science, 2005, 88(6):2017-2026.

DOI PMID

[24]
BERNABUCCI U, RONCHI B, LACETERA N, et al. Markers of oxidative status in plasma and erythrocytes of transition dairy cows during hot season[J]. Journal of Dairy Science, 2002, 85(9):2173-2179.

DOI PMID

[25]
BAHAR E, KIM J Y, YOON H. Quercetin attenuates manganese-induced neuroinflammation by alleviating oxidative stress through regulation of apoptosis,iNOS/NF-κB and HO-1/Nrf2 pathways[J]. International Journal of Molecular Sciences, 2017, 18(9):1989.

DOI

[26]
李敏. 槲皮素及其糖苷衍生物芦丁对心肌纤维化的抑制作用及机制研究[D]. 博士学位论文. 长春: 吉林大学, 2014.

LI M. Inhibition of isoproterenol-induced cardiac fibrosis in rat by quercetin and its glycoside derivative rutin[D]. Ph.D.Thesis. Changchun: Jilin University, 2014. (in Chinese)

[27]
TONELLI C, CHIO I I C, TUVESON D A. Transcriptional regulation by Nrf2[J]. Antioxidants & Redox Signaling, 2018, 29(17):1727-1745.

[28]
DEVLING T W P, LINDSAY C D, MCLELLAN L I, et al. Utility of siRNA against Keap1 as a strategy to stimulate a cancer chemopreventive phenotype[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(20):7280-7285A.

DOI PMID

[29]
WAKABAYASHI N, ITOH K, WAKABAYASHI J, et al. Keap1-null mutation leads to postnatal lethality due to constitutive Nrf2 activation[J]. Nature Genetics, 2003, 35(3):238-245.

DOI PMID

[30]
HO H K, WHITE C C, FERNANDEZ C, et al. Nrf2 activation involves an oxidative-stress independent pathway in tetrafluoroethylcysteine-induced cytotoxicity[J]. Toxicological Sciences, 2005, 86(2):354-364.

PMID

[31]
KIM C, JANG J S, CHO M R, et al. Taurine chloramine induces heme oxygenase-1 expression via Nrf2 activation in murine macrophages[J]. International Immunopharmacology, 2010, 10(4):440-446.

DOI PMID

[32]
TANAKA M, KISHIMOTO Y, SASAKI M, et al. Terminalia bellirica (Gaertn.) roxb. extract and gallic acid attenuate LPS-induced inflammation and oxidative stress via MAPK/NF-κB and Akt/AMPK/Nrf2 pathways[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018:9364364.

[33]
JAGANJAC M, MILKOVIC L, SUNJIC S B, et al. The NRF2,thioredoxin, and glutathione system in tumorigenesis and anticancer therapies[J]. Antioxidants, 2020, 9(11):1151.

DOI

[34]
HAWKES H J K, KARLENIUS T C, TONISSEN K F. Regulation of the human thioredoxin gene promoter and its key substrates:a study of functional and putative regulatory elements[J]. Biochimica et Biophysica Acta, 2014, 1840(1):303-314.

[35]
SAKURAI A, NISHIMOTO M, HIMENO S, et al. Transcriptional regulation of thioredoxin reductase 1 expression by cadmium in vascular endothelial cells:role of NF-E2-related factor-2[J]. Journal of Cellular Physiology, 2005, 203(3):529-537.

DOI

[36]
HARVEY C J, THIMMULAPPA R K, SINGH A, et al. Nrf2-regulated glutathione recycling Independent of biosynthesis is critical for cell survival during oxidative stress[J]. Free Radical Biology & Medicine, 2009, 46(4):443-453.

DOI

[37]
邓海斌. 转醛醇酶(TALDO)在人非小细胞肺癌中的表达研究[D]. 硕士学位论文. 衡阳: 南华大学, 2017.

DENG H B. Expression of transaldolase (TAL) in non-small cell lung cancer and its clinical significance[D]. Master's Thesis. Hengyang: University of South China, 2017. (in Chinese)

[38]
BANKI K, COLOMBO E, SIA F, et al. Oligodendrocyte-specific expression and autoantigenicity of transaldolase in multiple sclerosis[J]. The Journal of Experimental Medicine, 1994, 180(5):1649-1663.

DOI

[39]
ALAM J, STEWART D, TOUCHARD C, et al. Nrf2,a cap‘n'collar transcription factor,regulates induction of the heme oxygenase-1 gene[J]. Journal of Biological Chemistry, 1999, 274(37):26071-26078.

DOI

[40]
GOZZELINO R, JENEY V, SOARES M P. Mechanisms of cell protection by heme oxygenase-1[J]. Annual Review of Pharmacology and Toxicology, 2010, 50:323-354.

DOI PMID

[41]
GOZZELINO R, SOARES M P. Coupling heme and iron metabolism via ferritin H chain[J]. Antioxidants & Redox Signaling, 2014, 20(11):1754-1769.

[42]
WU K C, CUI J Y, KLAASSEN C D. Beneficial role of Nrf2 in regulating NADPH generation and consumption[J]. Toxicological Sciences, 2011, 123(2):590-600.

DOI PMID

[43]
GAO W N, PU L L, CHEN M, et al. Glutathione homeostasis is significantly altered by quercetin via the Keap1/Nrf2 and MAPK signaling pathways in rats[J]. Journal of Clinical Biochemistry and Nutrition, 2018, 62(1):56-62.

DOI PMID

[44]
RUSHWORTH S A, ZAITSEVA L, MURRAY M Y, et al. The high Nrf2 expression in human acute myeloid leukemia is driven by NF-κB and underlies its chemo-resistance[J]. Blood, 2012, 120(26):5188-5198.

DOI PMID

[45]
ZHANG Z, ZHOU J, SONG D Q, et al. Gastrodin protects against LPS-induced acute lung injury by activating Nrf2 signaling pathway[J]. Oncotarget, 2017, 8(19):32147-32156.

DOI PMID

[46]
SUN C Y, XU L Q, ZHANG Z B, et al. Protective effects of pogostone against LPS-induced acute lung injury in mice via regulation of Keap1-Nrf2/NF-κB signaling pathways[J]. International Immunopharmacology, 2016, 32:55-61.

DOI

[47]
CHEN X L, DODD G, THOMAS S, et al. Activation of Nrf2/ARE pathway protects endothelial cells from oxidant injury and inhibits inflammatory gene expression[J]. American Journal of Physiology:Heart and Circulatory Physiology, 2006, 290(5): H1862-H1870.

文章导航

/