研究论文

基于转录组测序技术研究饲粮维生素E调控山羊皮下脂肪中脂肪酸代谢的机理

  • 周胜花 , 1 ,
  • 薛丽娜 1, * ,
  • 陈正灏 1 ,
  • 艾小楠 1 ,
  • 李俊 1 ,
  • 郭慧慧 1 ,
  • 孟德荣 2 ,
  • 宋献艺 , 1, **
展开
  • 1 山西农业大学动物科学学院,太谷 030801
  • 2 山西省灵丘县畜牧兽医服务中心,灵丘 034400
**宋献艺,研究员,硕士生导师,E-mail:

*同等贡献作者

周胜花(1971—),女,山西灵丘人,研究员,硕士,研究方向为动物遗传育种与繁殖。E-mail:

Copy editor: 陈 鑫

收稿日期: 2022-10-18

  网络出版日期: 2023-05-11

基金资助

山西省重点研发计划项目(201903D221003)

山西省现代农业产业技术体系建设专项(2022-14)

山西省农业科学院科技自主创新能力提升工程项目(2017ZZCX-28)

Mechanism of Dietary Vitamin E Regulating Metabolism of Fatty Acids in Goat Subcutaneous Fat Based on Transcriptome Sequencing Technology

  • ZHOU Shenghua , 1 ,
  • XUE Li’na 1 ,
  • CHEN Zhenghao 1 ,
  • AI Xiaonan 1 ,
  • LI Jun 1 ,
  • GUO Huihui 1 ,
  • MENG Derong 2 ,
  • SONG Xianyi , 1, **
Expand
  • 1 College of Animal Science, Shanxi Agricultural University, Taigu 030801, China
  • 2 Animal Husbandry and Veterinary Workstation in County, Shanxi Province, Lingqiu 034400, China
**professor, E-mail:

*Contributed equally

Received date: 2022-10-18

  Online published: 2023-05-11

摘要

本研究旨在利用RNA测序(RNA-Seq)方法探究饲粮维生素E(VE)调控山羊皮下脂肪中脂肪酸代谢机理。试验选取40只健康的初始平均体重[(16.39±0.59) kg,P>0.05)]相近的灵丘青背山羊断奶公羔,随机分为4组,每组10个重复。各组VE(DL-α-生育酚乙酸酯)的添加水平分别为0(CON组)、100(VE100组)、250(VE250组)和500 IU/(只·d)(VE500组)。预试期10 d,正试期92 d。结果表明:1)饲粮中添加VE对山羊生长性能无显著影响(P>0.05)。2)与CON组相比,饲粮中添加VE显著提高了山羊皮下脂肪组织中VE含量(P<0.05)。3)与CON组相比,VE500组皮下脂肪组织中总饱和脂肪酸(SFA)含量显著减少(P<0.05),总单不饱和脂肪酸(MUFA)含量显著升高(P<0.05)。4)在CON组和VE500组中共筛选出866个差异表达基因(DEGs),包括429个上调基因和437个下调基因。GO功能分析表明,DEGs主要富集在脂质代谢、脂肪酸合成酶活性、脂肪酸延长酶活性等生物学过程。KEGG通路功能分析显示,DEGs在62条代谢通路中富集,在这些代谢通路中以不饱和脂肪酸的生物合成和脂肪酸的生物合成为主,过氧化物酶体增殖物激活受体(PPAR)信号通路、促分裂原活化蛋白激酶(MAPK)信号通路和钙信号通路等在脂肪酸代谢中有重要的作用。5)与CON组相比,饲粮中添加VE显著上调脂肪酸代谢关键酶超长链脂肪酸延伸酶3(ELOVL3)、超长链脂肪酸延伸酶5(ELOVL5)基因相对表达量(P<0.05),显著下调超长链脂肪酸延伸酶7(ELOVL7)、超长链脂肪酸延伸酶6(ELOVL6)和脂肪酸合成酶(FASN)基因相对表达量(P<0.05)。综上所述,饲粮中添加500 IU/(只·d)VE可改善山羊脂肪酸组成,本研究确定了VE调节脂肪酸代谢相关的重要基因和信号通路,这为深入了解通过营养调控途径改善山羊皮下脂肪脂肪酸组成的分子机理提供理论依据。

本文引用格式

周胜花 , 薛丽娜 , 陈正灏 , 艾小楠 , 李俊 , 郭慧慧 , 孟德荣 , 宋献艺 . 基于转录组测序技术研究饲粮维生素E调控山羊皮下脂肪中脂肪酸代谢的机理[J]. 动物营养学报, 2023 , 35(5) : 3266 -3279 . DOI: 10.12418/CJAN2023.303

Abstract

This experiment was aimed to study the mechanism of dietary vitamin E (VE) regulating metabolism of fatty acids in goat subcutaneous fat by RNA-Seq technique. Forty weaned male Lingqiu Qingbei goats with similar body weight [approximately (16.39±0.59) kg, P>0.05] and good health were randomly divided into four groups, and each group had 10 replicates. Each group of goats were fed a basal diet added with 0 (CON group), 100 (VE100 group), 250 (VE250 group) and 500 IU/(goat ·d) VE (DL-α-tocopheryl acetate) (VE500 group). The pre-trial period lasted for 10 days and the experimental period lasted for 92 days. The results showed as follows: 1) dietary VE had no significant effect on growth performance of goats (P>0.05). 2) Compared with CON group, VE content in the goat subcutaneous fat increased significantly after dietary VE supplementation (P<0.05). 3) Compared with CON group, the total saturated fatty acid content decreased significantly (P<0.01) and the total monounsaturated fatty acid content increased significantly (P<0.05) in VE500 group. 4) A total of 866 differentially expressed genes(DEGs) were screened in CON group and VE500 group, which 429 genes were up-regulated, while 437 genes were down-regulated. The GO function analysis showed that DEGs were highly enriched in the biological processes such as lipid metabolic process, fatty acid synthase activity, fatty acid elongase activity. The KEGG pathway were significantly enriched to 62 pathways, in which unsaturated fatty acid biosynthesis and fatty acid biosynthesis were the main metabolic pathways, peroxisome proliferator activated receptor (PPAR) signaling pathway, mitogen activated protein kinase (MAPK) signaling pathway and calcium signaling pathway played an important role in fatty acid metabolism. 5)Compared with the CON group, the relative expression levels of extra-long chain fatty acid extentase 3 (ELOVL3) and extra-long chain fatty acid extentase 5 (ELOVL5) genes, which were key enzymes for fatty acid metabolism were significantly up-regulated (P<0.05), while the relative expression levels of extra-long chain fatty acid extentase 7 (ELOVL7), extra-long chain fatty acid extentase 6 (ELOVL6) and fatty acid synthase (FASN) genes were significantly down-regulated (P<0.05). In conclusion, dietary supplemental 500 IU/(goat·d) VE can improve the fatty acid composition of goats. This study identify the important genes and signal pathways related to VE regulation of fatty acid metabolism, which provides a theoretical basis for further understanding the molecular mechanism of improving the subcutaneous fatty acid composition of goats through nutritional regulation.

肉类是人们饮食中脂肪的重要来源。近年来由于低饱和脂肪酸(SFA)和高多不饱和脂肪酸(PUFA)可降低人类患冠心病的风险,人们越来越重视肉类中的脂肪酸组成[1]。但饲粮中PUFA在山羊瘤胃中经历广泛的生物加氢会产生大量SFA,而SFA中的硬脂酸(C18∶0)的含量与羊肉的膻味强度呈正相关,这使得羊肉品质下降,同时也降低消费者的接受度,给肉类行业造成相当大的经济损失[2-3]
维生素E(VE)是一种必需的微量营养元素,在维持正常繁殖功能、提高机体免疫、保护机体损伤、改善肉品质等方面有重要作用[4-6]。已有研究表明,在饲粮中添加适量的VE可延缓羊肉产品脂质氧化,改变羊肉中脂肪酸含量以及减少皮下脂肪沉积[7-9]。Berthelot等[10]和González-Calvo等[11]认为,在饲粮中添加VE可影响羔羊脂肪组织中不饱和脂肪酸的含量及脂质生物合成过程、胆固醇和固醇相关基因的表达。多年来,VE的作用被归因于其具有强大的抗氧化能力,直到1991年Angelo Azzi的团队首次证明VE(尤其是α-生育酚)的非抗氧化能力即VE是一种细胞信号分子,对基因表达有特异的调控作用,可通过调节mRNA水平上的细胞信号转导来影响许多生物学功能[12-14]。目前,在啮齿类动物和人中有大量关于营养改变对特定基因表达调控的研究,但对反刍动物的研究还很少。因此,本研究通过RNA测序(RNA-Seq)技术对饲粮中添加了VE的山羊皮下脂肪组织进行研究,深入了解VE调控山羊脂肪酸组成及其分子机制,挖掘与脂肪酸组成相关的重要基因和调控通路,为通过营养调控改善肉品质提供理论依据。

1 材料与方法

1.1 试验设计

试验采用单因素随机分组设计,选取40只3月龄初始体重[(16.39±0.59) kg,P>0.05]相近的灵丘青背山羊断奶公羔,平均分为4组,每组10个重复,在同一羊舍分栏喂养。各组VE(DL-α-生育酚乙酸酯)的添加水平分别为0(CON组)、100(VE100组)、250(VE250组)和500 IU/(只·d)(VE500组),VE的添加水平参照罗海玲等[15]的研究。饲喂时间共计102 d,其中预试期10 d,正试期92 d。从断奶到屠宰所有羔羊饲喂同样的基础饲粮,基础饲粮组成根据灵丘当地饲草资源情况并参照《肉羊饲养标准》(NY/T 816—2004)[16]配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
花生蔓Peanut vine 50.00
玉米Corn 31.00
豆粕Soybean meal 7.40
棉籽粕Cottonseed meal 5.00
麸皮Wheat bran 3.75
石粉Limestone 0.70
磷酸氢钙CaHPO4 0.40
小苏打NaHCO3 0.40
食盐NaCl 0.45
过瘤胃脂肪粉Rumen protected fat powder 0.40
预混料Premix1) 0.50
合计Total 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 12.04
粗蛋白质CP 14.50
粗灰分Ash 7.06
粗纤维CF 17.74
钙Ca 1.77
磷P 0.32

1) 每千克预混料含有One kilogram of premix contained the following:VA 250 000 IU,VD3 50 000 IU,VE 25 000 IU,Fe 5 000 mg,Mn 4 000 mg,Zn 4 000 mg,Cu 1 000 mg,Se 30 mg,I 50 mg,Co 25 mg,烟酸 nicotinic acid 3 000 mg。

2) 消化能是根据饲粮原料组成以干物质为基础计算得到[17],其余均为实测值。DE was calculated according to feed ingredient composition on the dry matter basis[17], while the others were measured values.

1.2 饲养管理

试验开始前对供试羔羊编号、防疫及驱虫,试验圈舍全面消杀。羔羊每天06:00和18:00定量进食精料,将不同水平VE与精料混匀并分组喂养,确保吃完后,再饲喂花生蔓,全天自由饮水。

1.3 样本采集

试验结束后禁食24 h,每组选择4只接近平均体重羔羊屠宰,采集寰椎与颈椎中轴之间的皮下脂肪,冲洗干净,一份置于无菌EP管中,液氮速冻,用于转录组测序分析;一份置于无菌EP管中,干冰保存,用于组织中VE含量检测;一份放入袋中,干冰保存,用于组织中脂肪酸含量检测。

1.4 指标检测

1.4.1 生长性能、皮下脂肪组织VE含量和脂肪酸组成检测

试验开始和结束对试验羊只空腹称重,记录每天饲喂量和食槽内剩料量,以上测定数据用以计算平均日增重、平均日采食量和料重比。皮下脂肪组织中VE的含量用VE测定试剂盒(比色法)(A008-1-1南京,建成)检测,具体操作参考使用手册。皮下脂肪组织中脂肪酸含量检测参照食品安全国家标准食品中脂肪酸的测定方法(GB 5009.168—2016)。方法如下:取100 g试样酸水解,然后用乙醇-乙醚石油醚混合液萃取抽提样品中粗脂肪,加入2%氢氧化钠甲醇溶液8 mL,在85 ℃水浴进行甲酯化,各脂肪酸含量用Agilent 7890A气相色谱仪检测,配备色谱柱为HP-88(100 m×0.25 mm×0.20 μm)。柱温130 ℃保持5 min,以4 ℃/min的速率升温至240 ℃,保持30 min;进样口温度250 ℃,载气流速为0.5 mL/min;以10∶1分流进样;检测仪器为FID,温度为250 ℃。

1.4.2 转录组测序分析

选择CON组和VE500组皮下脂肪组织(n=8,每组4个),CON组样本编号为A1、A2、A3、A4;VE500组样本编号为:D1、D2、D3、D4。用Trizol法(Invitrogen公司,美国)提取组织总RNA,用RNA 6000 Nano Kit(Aglilent公司,美国)和NanoDrop NC 2000(Thermo Scientific,美国)分光光度计评估RNA样本的浓度、纯度和完整性。随后用TruSeq mRNA LT Sample Prep Kit(Illumina,美国)制备cDNA文库,使用Agilent 2100评估文库构建质量。利用Quant-iT PicoGreen dsDNA Assay Kit(Invitrogen公司,美国)检测文库总浓度,将建好的文库稀释至10nmol/L并利用南京派森诺基因科技有限公司的NovaSeq 6000(Illumina,美国)测序。测序获得FASTQ格式的原始数据(raw data)。用Cutadapt(v2.7)软件和FastQC(v0.11.8)软件对测序数据进行过滤质控获得高质量的序列(clean reads),通过HISAT2(v2.1.0)将clean reads比对到Ensembl山羊参考基因组(v101.1),用HTSeq软件(v0.9.1)统计比对到每一个基因上的clean reads条数。计算FPKM值对表达量进行标准化。采用DESeq软件(v1.39.0)对基因表达进行差异分析。使用topGO(v2.40.0)进行GO富集分析,使用Clusterprofiler软件(v3.16.1)进行KEGG富集分析。

1.4.3 测序结果的实时荧光定量PCR验证

使用TRNzol Universal总RNA提取试剂盒(DP424,天根)进行样本RNA提取,试验操作按产品说明书进行。将RNA反转录为cDNA,试验操作按HiFiScript gDNA Removal cDNA Synthesis Kit(CW2582M,康为世纪)产品说明书进行。实时荧光定量PCR反应体系的构建依据QuantiNova SYBR Green PCR Kit(208054,Qiagen)说明:上、下游引物各0.2 μL,2×SYBR Green PCR Master Mix 5 μL,cDNA模板1 μL,补充水至10 μL。反应在ABI荧光定量的仪器上进行,反应条件设置为:95 ℃,3 min;95 ℃,10 s;60 ℃,30 s;共40个循环;熔解反应条件:95 ℃,15 s;60 ℃,1 min;95 ℃,15 s,引物信息见表2
表2 实时荧光定量PCR引物信息

Table 2 Primer information of qRT-PCR

基因
Genes
引物序列
Primer sequence(5'—3')
GenBank登录号
GenBank accession No.
产物大小
Product size/bp
超长链脂肪酸延伸酶6
ELOVL6
F:CTGGTCCTCGCTCATGTACC
R:AGCCTTCGTTGCTTTCCTCA
NM_001314257.1 97
乙酰辅酶A羧化酶α
ACACA
F:ATGTGGTGGTCCACTCTGATG
R:TCCTTCAAAACGAGCCCTCA
XM_018064168.1 108
脂肪酸合成酶
FASN
F:CTTAACAGCACGTCCCCCAT
R:TCCTCGGGCTTGTCTTGTTC
NM_001285629.1 149
长链酯酰辅酶A合成酶1
ACSL1
F:TCTCATGGACTCCTACGGCA
R:GGCTTCTGTCTGTTGGCTCT
XM_005698718.3 111
溶质转运27家族成员2
SLC27A2
F:CGTGGCAATTTTCATGGGCA
R:GCGGCTTGTAGTTCTGGTGA
XM_005685790.3 174
β-肌动蛋白
β-actin
F:CCCTGGAGAAGAGCTACGAG
R:CAGGAAGGAAGGCTGGAAGA
NM_001314342.1 98

1.5 数据统计分析

利用SPSS 22.0软件进行单因素方差分析 (one-way ANOVA),并对组间差异进行多重比较,结果分为差异显著(P<0.05)和差异极显著(P≤0.01)。筛选差异表达基因(DEGs)的条件为|log2(Fold Change)|>0且P<0.05,GO和KEGG显著富集的条件为P≤0.05。

2 结果与分析

2.1 饲粮VE水平对山羊生长性能、皮下脂肪组织VE含量和脂肪酸组成的影响

表3可知,各组山羊始重差异不显著(P>0.05),符合试验要求。随着饲粮中VE水平的增
加,各组山羊末重、平均日增重、平均日采食量和料重比均无显著差异(P>0.05),但随着饲粮VE水平的增加,皮下脂肪组织中VE含量相应升高且差异显著(P<0.05)。
表3 饲粮VE水平对山羊生长性能和皮下脂肪中VE含量的影响

Table 3 Effects of dietary VE levels on growth performance and VE content in subcutaneous fat of goats

项目
Items
组别Groups SEM P
P-value
CON VE100 VE250 VE500
始重IBW/kg 16.26 16.58 16.68 16.06 0.59 0.96
末重FBW/kg 25.19 26.27 24.90 25.38 0.96 0.76
平均日增重ADG/g 87.64 95.07 80.64 91.38 6.02 0.45
平均日采食量ADFI/g 437.52 481.93 412.68 496.22 18.56 0.81
料重比F/G 5.04 5.26 5.17 5.42 1.32 0.52
维生素E含量VE content/(μg/g) 3.27a 6.25b 8.07c 11.13d 1.09 0.02

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P≤0.01)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference(P>0.05), while with different small letter superscripts mean significant difference(P<0.05), and with different capital letter superscripts mean significant difference(P≤0.01). The same as below.

饲粮中添加500 IU/(只·d)VE对山羊脂肪酸组成的影响见表4。与CON组相比,VE500组皮下脂肪组织中的棕榈酸(C16∶0)和硬脂酸(C18∶0)的含量显著降低(P<0.05);VE500组皮下脂肪组织中的棕榈油酸(C16:1n7,P<0.05)、油酸(C18∶1n9c,P<0.01)和α-亚麻酸(C18∶3n3,P<0.01)的含量显著或极显著增加,总MUFA的含量显著增加(P<0.05)。
表4 饲粮VE水平对山羊皮下脂肪中脂肪酸组成的影响

Table 4 Effects of dietary VE levels on fatty acid composition in subcutaneous fat of goats mg/g

项目
Items
组别Groups SEM P
P-value
CON VE500
饱和脂肪酸SFA
葵酸C10∶0 2.59 2.27 0.01 0.140
月桂酸C12∶0 3.06 2.83 0.02 0.923
十三碳酸C13∶0 0.24 0.25 0.00 0.084
肉豆蔻酸C14∶0 37.53 25.21 0.06 0.118
十五碳酸C15∶0 6.31 6.49 0.01 0.255
棕榈酸C16∶0 122.32a 106.14b 0.20 0.015
硬脂酸C18∶0 305.84a 256.56b 0.25 0.031
单不饱和脂肪酸MUFA
肉豆蔻油酸C14∶1n5 3.03 2.69 0.00 0.438
棕榈油酸C16∶1n7 12.28a 13.66b 0.02 0.030
油酸C18∶1n9c 325.96A 348.72B 0.30 0.001
二十碳一烯酸C20∶1 3.95 4.51 0.04 0.851
芥酸C22∶1n9 2.30 2.15 0.00 0.203
多不饱和脂肪酸PUFA
亚油酸C18∶2n6c 21.47 21.13 0.02 0.919
α-亚麻酸C18∶3n3 1.69A 2.06B 0.01 0.001
二十碳二烯酸C20∶2 0.59 0.53 0.00 0.323
二十碳三烯酸C20∶3n6 0.27 0.28 0.00 0.234
各类脂肪酸总和Sum of different class fatty acids
总饱和脂肪酸∑SFA 477.89A 399.75B 1.52 0.007
总单不饱和脂肪酸∑MUFA 347.52a 371.73b 0.71 0.021
总多不饱和脂肪酸∑PUFA 24.02 24.00 1.34 0.397

2.2 转录组测序数据差异表达分析

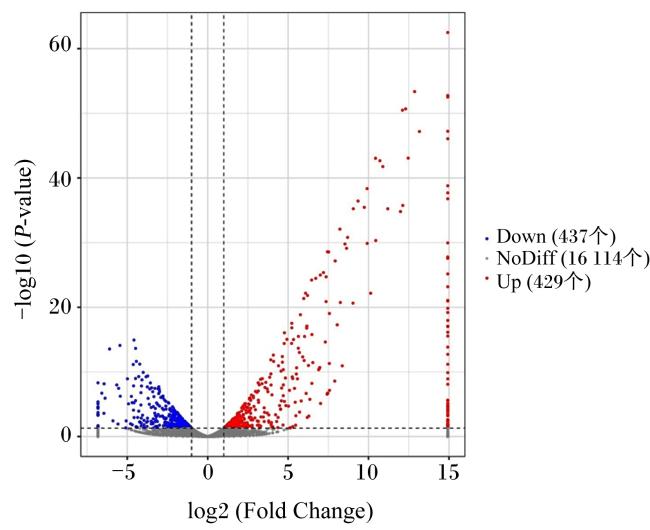
CON组和VE500组山羊皮下脂肪组织转录组测序分别获得了平均51 402 167和48 940 974个原始 reads数据,经质控后分别得到平均47 909 614和45 437 709个过滤 reads数,过滤 reads数百分比为92.10%~93.33%,比对到基因的reads数分别平均为45 950 109和43 742 149个。比对到基因的序列总数百分比(比对率)为95.73%~96.73%(表5)。对基因表达进行差异分析,共筛选出866个DEGs,其中有429个上调DEGs和437个下调DEGs(图1)。
表5 测序数据质量和序列比对

Table 5 Sequencing data quality and sequence alignment

样品
Samples
原始reads数
Raw reads number
过滤reads数
Clean reads number
过滤reads数百分比
Clean reads number
percentage/%
比对到基因的reads数
Mapped to gene reads
number
比对率
Mapping
ratio/%
A1 47 896 056 44 612 394 93.14 42 734 229 95.79
A2 47 366 620 44 260 136 93.44 42 555 275 96.15
A3 54 215 898 50 394 018 92.95 48 373 161 95.99
A4 56 130 096 52 371 908 93.30 50 137 773 95.73
D1 57 677 516 53 124 878 92.10 51 158 802 96.30
D2 45 597 678 42 503 912 93.21 40 803 203 96.00
D3 44 695 772 41 515 536 92.88 39 857 881 96.01
D4 47 792 932 44 606 510 93.33 43 148 709 96.73
图1 差异表达基因的火山图

Down:下调;NoDiff:无差异;Up:上调;Fold Change:差异倍数;P-value:P值。

Fig.1 Volcano plot of differentially expressed genes

2.3 DEGs的GO功能富集分析

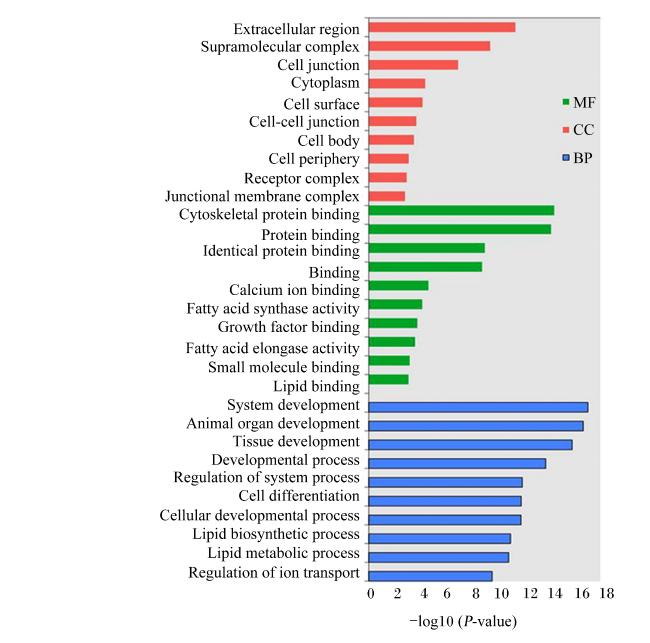
对DEGs进行GO功能富集分析,按照分子功能(MF)、生物过程(BP)和细胞组成(CC)进行GO分类,每个GO分类中富集最显著的前10个GO条目,如图2所示。与CON组相比,VE500组的DEGs参与了多种生物过程,包括系统发育、脂质代谢过程和脂质生物合成过程等;在分子功能类别上,DEGs与脂肪酸合成酶(FASN)活性、脂肪酸延长酶活性和脂质结合等相关;在细胞组成范畴内,DEGs被富集到细胞外组分、超分子络合物和细胞连接等。
图2 差异表达基因的GO功能富集分析

Extracellular region:细胞外组分;Supramolecular complex:超分子复合物;Cell junction:细胞连接;Cytoplasm:细胞质;Cell surface:细胞表面;Cell-cell junction:细胞-细胞连接;Cell body:胞体;Cell periphery:细胞周边;Receptor complex:受体复合物;Junctional membrane complex:连接膜复合物;Cytoskeletal protein binding:细胞骨架蛋白结合;Protein binding:蛋白结合;Identical protein binding:相同蛋白结合;Binding:结合;Calcium ion binding:钙离子结合;Fatty acid synthase activity:脂肪酸合成酶活性;Growth factor binding:生长因子结合;Fatty acid elongase activity:脂肪酸延长酶活性;Small molecule binding:小分子结合;Lipid binding:脂质结合;System development:系统发育;Animal organ development:动物器官发育;Tissue development:组织发育;Developmental process:发育过程;Regulation of system process:系统过程的调控;Cell differentiation:细胞分化;Cellular developmental process:细胞发育过程;Lipid biosynthetic process:脂质生物合成过程;Lipid metabolic process:脂质代谢过程;Regulation of ion transport:离子传输的调控;MF:分子功能Molecular function; CC:细胞组成Cellular component;BP:生物过程Biological process;P-value:P值。

Fig.2 GO function enrichment analysis of differentially expressed genes

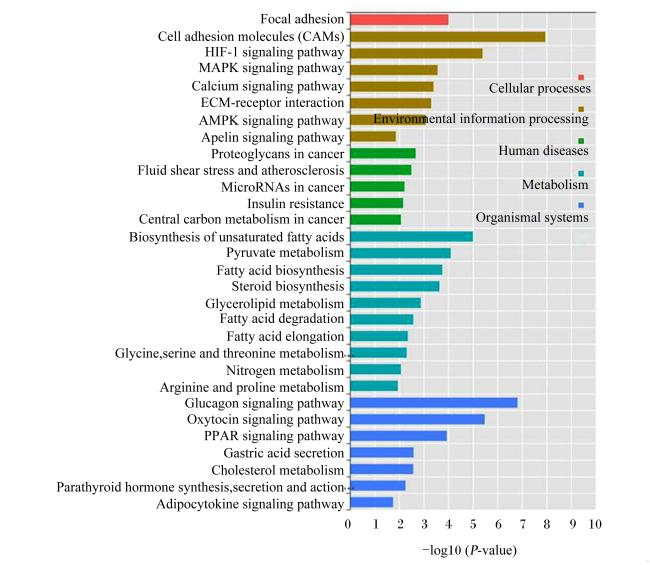
通过KEGG对DEGs信号通路富集分析,前20个显著富集到的代谢途径如图3所示。与CON组相比,VE500组共有62条信号通路显著富集于细胞过程、环境信息处理、人类疾病、新陈代谢和有机系统。其中有15条信号通路中包括109个基因参与到脂代谢过程(表6),在这些代谢途径中以不饱和脂肪酸的生物合成和脂肪酸的生物合成为主,过氧化物酶体增殖物激活受体(PPAR)信号通路、促分裂原活化蛋白激酶(MAPK)信号通路和钙信号通路等在脂肪酸代谢中有重要的作用。
图3 差异表达基因的KEGG通路富集分析

Focal adhesion:黏着斑;Cell adhesion molecules (CAMs):细胞黏附分子;HIF-1 signaling pathway:HIF-1信号通路;MAPK signaling pathway:促分裂原活化蛋白激酶信号通路;Calcium signaling pathway:钙信号通路;ECM-receptor interaction:细胞外基质-受体相互作用;AMPK signaling pathway:丝裂原活化蛋白激酶信号通路;Apelin signaling pathway:Apelin信号通路;Proteoglycans in cancer:癌症蛋白聚糖;Fluid shear stress and atherosclerosis:流体剪切应力和动脉粥样硬化;MicroRNAs in cancer:癌症中的MicroRNAs;insulin resistance:胰岛素抵抗;Central carbon metabolism in cancer:癌症中的中枢碳代谢;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Pyruvate metabolism:丙酮酸代谢;Fatty acid biosynthesis:脂肪酸生物合成;Steroid biosynthesis:类固醇生物合成;Glycerolipid metabolism甘油酯代谢;Fatty acid degradation:脂肪酸降解;Fatty acid elongation:脂肪酸延伸;Glycine,serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Nitrogen metabolism:氮代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Glucagon signaling pathway:胰高糖素信号通路;Oxytocin signaling pathway:催产素信号通路;PPAR signaling pathway:过氧化物酶体增殖物激活受体信号通路;Gastric acid secretion:胃酸分泌;Cholesterol metabolism:胆固醇代谢;Parathyroid hormone synthesis,secretion and action:甲状旁腺激素的合成、分泌和作用;Adipocytokine signaling pathway:Adipocytokine信号通路;Cellular processes:细胞过程;Environmental information processing:环境信息处理;Human diseases:人类疾病;Metabolism:新陈代谢;Organismal systems:生物系统;P-value:P值。

Fig.3 KEGG pathway enrichment analysis of differentially expressed genes

表6 脂肪酸代谢相关通路主要的差异表达基因

Table 6 Fatty acid metabolism related pathways represented by differentially expressed genes

通路Pathways 编号ID 基因Genes
不饱和脂肪酸的生物合成
Biosynthesis of unsaturated fatty acids
chx01040 ELOVL7、ACOX3、ELOVL6、ELOVL3、ELOVL5、
HSD17B12、ENSCHIG00000015460
过氧化物酶体增殖物激活受体
信号通路
PPAR signaling pathway
chx03320 CPT1BANGPTL4、CPT1AENSCHIG00000021348、SLC27A2、
CPT2、PCK2、ACOX3、ENSCHIG00000015460、ACSL1、ACSL5
脂肪酸生物合成
Fatty acid biosynthesis
chx00061 ACACBACSL1、ACSL5、ACACAFASN
类固醇生物合成
Steroid biosynthesis
chx00100 DHCR24、TM7SF2、FDFT1、CYP51A1、
DHCR7、MSMO1
促分裂原活化蛋白激酶信号通路
MAPK signaling pathway
chx04010 CACNA1SJUNEFNA1、CACNB1、HSPA6、MAPTKITNTF3、
PPP3CAPPP5CCACNG6、MEF2CFGF6、MECOMCACNG1、
FLNCNR4A1、DUSP1、METFOSDUSP8、PLA2G4AMRAS
ERBB2、MAPK8IP1、BDNFERBB3、DUSP4
钙信号通路
Calcium signaling pathway
chx04020 ENSCHIG00000013874、TNNC1、ATP2A1、LK4、PPP3CARYR1、
CAMK2ACACNA1STNNC2、PHKA1、CAMK2BMYLK2、
PLCG1、ADCY2、ITPR3、ERBB3、PLCG2、P2RX1、ERBB2
甘油酯代谢
Glycerolipid metabolism
chx00561 LPIN1、LIPGGLYCTKENSCHIG00000015313、
ENSCHIG00000027223、GPAMAGPAT2、
AGPAT3、PNPLA3、ENSCHIG00000012088
脂肪酸降解
Fatty acid degradation
chx00071 CPT1ACPT1BACOX3、ACSL1、ACSL5、CPT2
脂肪酸延伸
Fatty acid elongation
chx00062 ELOVL7、ELOVL3、ELOVL6、HSD17B12、ELOVL5、PPT1
胆固醇代谢
Cholesterol metabolism
chx04979 LIPGSTARD3、ANGPTL4、ENSCHIG00000021348、ANGPTL8、
LDLRAPOEENSCHIG00000021287
Apelin信号通路
Apelin signaling pathway
chx04371 RYR1、MEF2CMYLK4、MYLK2、PPARGC1AEGR1、ADCY2、
MYL2、MRASSPP1、CCN2、ITPR3、CDH1
Wnt信号通路
Wnt signaling pathway
chx04310 CAMK2BJUNCAMK2APPP3CAWNT2BWIF1、SERPINF1、
WNT5ASFRP4、ENSCHIG00000025136、SFRP2、WNT2、SFRP1
Alpha-亚麻酸代谢
Alpha-linolenic acid metabolism
chx00592 ENSCHIG00000011083、ACOX3、
ENSCHIG00000015460、PLA2G4A
哺乳动物雷帕霉素靶蛋白信号通路
mTOR signaling pathway
chx04150 GRB10、SGK1、EIF4EBP1、RRAGDFNIP2、
WNT2BCAB39LWNT5AWNT2、SLC7A5
磷脂酶D信号通路
Phospholipase D signaling pathway
chx04072 PLCG1、ADCY2、KITAGPAT2、AGPAT3、
PLCG2、PLA2G4AMRAS

ELOVL7:超长链脂肪酸延伸酶7 longase of verylong chain fatty acids 7; ACOX3:酰基辅酶A氧化酶 acyl-CoA oxidase; ELOVL6:超长链脂肪酸延伸酶6 longase of verylong chain fatty acids 6;ELOVL3: 超长链脂肪酸延伸酶3 longase of verylong chain fatty acids 3;ELOVL5:超长链脂肪酸延伸酶5 longase of verylong chain fatty acids 5;HSD17B12:17β-羟基类固醇脱氢酶12型 17 beta-hydroxysteroid dehydrogenase type 12;CPT1B:肉碱脂酰转移酶1B carnitine lipoyl transferase 1B;ANGPTL4:血管生成素样蛋白4 angiopoietin-like protein 4;CPT1A:肉碱脂酰转移酶1A carnitine lipoyl transferase 1A; SLC27A2:溶质转运27家族成员2 solute transport 27 family members 2; CPT2:肉碱棕榈酰基转移酶2 carnitine palmityl transferase 2;PCK2:磷酸烯醇式丙酮酸羧激酶 phosphoenolpyruvate carboxykinase;ACOX3:酰基辅酶A氧化酶 acyl-CoA oxidase; ACSL1:长链酯酰辅酶A合成酶1 long chain esteryl CoA synthetase 1;ACSL5:长链酯酰辅酶A合成酶5 long chain esteryl CoA synthetase 5;ACACB:乙酰辅酶A羧化酶β acetyl-CoA carboxylase beta; ACACA: 乙酰辅酶A羧化酶α acetyl-CoA carboxylase alpha;FASN:脂肪酸合成酶 fatty acid synthetase;DHCR24:24-脱氢胆固醇还原酶 24-dehydrocholesterol reductase;TM7SF2:跨膜7超族成员2 transmembrane 7 superfamily members 2;FDFT1:法尼基二磷酸法尼基转移酶1 Farnesitransferase diphosphate 1;CYP51A1:类固醇合成酶51-α羟化酶 steroid synthetase 51-alpha hydroxylase;DHCR7:7-脱氢胆固醇还原酶 7-dehydrocholesterol reductase;MSMO1:甲基固醇单加氧酶1 methylsterol monooxygenase 1;CACNA1S:L型钙离子通道α1亚单位编码基因 L-type calcium channel α1 subunit encoding gene;JUN:c-Jun家族癌基因c-Jun family oncogene;EFNA1:肝配蛋白A1 liver ligand protein A1;CACNB1: 钙通道电压依赖性β1蛋白 calcium channel voltage-dependent beta 1 protein;HSPA6: 热休克70-kDa蛋白A6 heat shock 70-kDa protein A6;MAPT: 微管相关蛋白tau microtubule-associated protein tau;NTF3:神经营养因子3 neurotrophic factor 3;PPP3CA: 蛋白磷酸酶3催化亚基-α-亚型 protein phosphatase 3 catalytic subunit-alpha-isoform;PPP5C: 丝氨酸/苏氨酸蛋白磷酸酶5 serine/threonine protein phosphatase 5; CACNG6:电压依赖钙离子通道γ亚基6 voltage dependent calcium channel gamma subunit 6;MEF2C:肌细胞增强因2C myocyte enhancement due to 2C;FGF6: 生长因子6 growth factor 6;CACNG1:电压依赖性钙离子通道γ亚基1 voltage-dependent calcium channel gamma subunit 1;FLNC:细丝蛋白 filamin;NR4A1:核受体亚家族4A组成员1 member of group 4A of the nuclear receptor subfamily 1; FOS:Fos原癌基因 protooncogene;DUSP8:双特异性磷酸酶8 bisspecific phosphatase 8;PL2G4A:磷脂酶A2-IVA phospholipase A2-IVA;MRAS:肌RAS癌基因同源基因 homologous gene of muscle RAS oncogene;ERBB2: 酪氨酸激酶受体2;K8IP1:BDNF: 脑源性神经营养因子 brain-derived neurotrophic factor;ERBB3:成红细胞白血病病毒致癌基因同源体3 erythroblastic leukemia virus oncogene homolog 3;Erb-b2:受体酪氨酸激酶3 receptor tyrosine kinase 3;DUSP4:双特异性磷酸酶4 bisspecific phosphatase 4;TNNC1: 肌钙蛋白C亚型1 troponin subtype C 1;ATP2A1: ATP酶肌浆/内质网Ca2+转运1 ATPase sarcoplasmic/endoplasmic reticulum Ca2+ transport 1;LK4: 神经酰胺激酶 ceramide kinase;RYR1:兰尼碱受体1 raniline receptor 1;CAMK2A:钙/钙调蛋白依赖性蛋白激酶2α calcium/calmodulin dependent protein kinase 2α;CACNA1S:钙离子通道主亚基α1 calcium channel main subunit α1;TNNC2:肌钙蛋白C亚型1 troponin subtype C 1;PHKA1:磷酸化激酶α1 phosphorylated kinase α1;CAMK2B:钙/钙调蛋白依赖性蛋白激酶2β calcium/calmodulin dependent protein kinase 2β;MYLK2:肌球蛋白轻链激酶2 myosin light streptokinase 2;PLCG1:磷脂酶C γ1 phospholipase C gamma 1;ADCY2:腺苷酸环化酶2 adenylate cyclase 2;ITPR3:肌醇1,4,5-三磷酸受3 inositol 1,4, 5-triphosphate is subject to 3;PLCG2:磷脂酶Cγ2 phospholipase C gamma 2;P2RX1:嘌呤能受体 purinergic receptor;LPIN1:脂素1 lipid 1;LIPG:内皮型脂肪酶G endothelial lipase G;GLYCTK:甘油酸激酶 glycerate kinase;GPAM:线粒体甘油-3-磷酸酰基转移酶 mitochondrial glycerol-3-phosphate acyltransferase;AGPAT2:1-酰基甘油-3-磷酸o-酰基转移酶2 O-acyltransferase 1-acylglycerol 3-phosphate 2;AGPAT3:1-酰基甘油-3-磷酸o -酰基转移酶3 1-acylglycerol 3-phosphate o-acyltransferase 3;PNPLA3:含patatin样磷脂酶域3 patatin-like phospholipase domain 3;PPT1: 棕榈酰蛋白硫酯酶1 palmitoyl protein thiesterase 1; ANGPTL8:血管生成素样蛋白8 angiopoietin-like protein 8;LDLR:低密度脂蛋白受体 low density lipoprotein receptor;APOE: 载脂蛋白E apoprotein E;MYLK4: 肌球蛋白轻链激酶4 myosin light streptokinase 4;PPARGC1A:过氧化物酶体增殖受体γ辅激活因子α peroxisome proliferating receptor gamma coactivator α;EGR1: 早期生长反应1 early growth response 1;MYL2:肌球蛋白调节性轻链2 myosin regulatory light chain 2;SPP1: 分泌型焦磷酸蛋白1 secreted pyrophosphoprotein 1;CCN2:结缔组织生长因子2 connective tissue growth factor 2;CDH1:上皮型钙黏附素 epithelial cadherin; WIF1:Wnt抑制因子1 Wnt inhibitory factor 1;SFRP4:分泌型卷曲相关蛋白4 secretory curl associated protein 4;SFRP2:分泌型卷曲相关蛋白2 secretory crimp-associated protein 2;SFRP1:分泌型卷曲相关蛋白1 secretory crimp-associated protein 1; GRB10:生长因子受体结合蛋白10 growth factor receptor binding protein 10;SGK1:血清/糖皮质激素调节激酶1 serum/glucocorticoid-regulated kinase 1;EIF4EBP1:真核翻译起始因子4E结合蛋白1 eukaryotic translation initiation factor 4E binding protein 1;RRAGD:Ras相关GTP结合蛋白D Ras-related GTP-binding protein D;FNIP2:卵泡刺激素结合蛋白2抗体 antibodies to follicle stimulating hormone binding protein 2;CAB39L:钙结合蛋白样39 calcium-binding protein-like 39;SLC7A5:溶质转运7家族成员5 solute transport 7 family members 5;PLCG1:磷脂酶Cγ1 Phospholipase C gamma 1。

2.4 DEGs的实时荧光定量PCR验证

为了检验转录组测序数据的准确性,在脂肪酸代谢相关通路中选出6个关键基因:超长链脂肪酸延伸酶6(ELOVL6)、乙酰辅酶A羧化酶α(ACACA)、FASN、长链酯酰辅酶A合成酶1(ACSL1)、溶质转运27家族成员2(SLC27A2),利用实时荧光定量PCR对转录组数据进行验证,所得结果与转录组测序结果如表7所示,5个脂肪酸代谢基因的实时荧光定量PCR的结果与转录组测序结果基本一致,进一步说明测序结果具有可靠性。
表7 实时荧光定量PCR验证转录组测序结果

Table 7 Transcriptome sequencing results verified by qRT-PCR results

基因名称
Gene names
RN测序RNA-Seq 实时荧光定量PCR qRT-PCR
差异倍数
Fold change
校正后P
Adjusted P-value
差异倍数
Fold change
P
P-value
超长链脂肪酸延伸酶6 ELOVL6 -1.43 0.004 -3.92 0.072
乙酰辅酶A羧化酶α ACACA -1.15 0.018 -1.72 0.021
脂肪酸合成酶FASN -1.32 0.034 -1.83 0.015
长链酯酰辅酶A合成酶1 ACSL1 -1.87 <0.001 -2.45 0.009
溶质转运27家族成员2 SLC27A2 -1.44 0.022 -1.92 0.042

3 讨论

本研究的目的是利用RNA-Seq技术揭示在断奶后山羊精料中添加VE对皮下脂肪组织的脂代谢通路和关键基因的影响。孙庆雨等[18]研究发现,饲粮中添加不同水平的VE对江南白鹅生长性能无显著影响。Khadangi等[12]研究发现,饲粮中添加不同水平的VE不会影响羔羊的日增重。本研究结果与前人研究结果基本一致,即饲粮添加VE对山羊的生长性能无显著影响。试验以皮下脂肪组织为研究对象,因为皮下脂肪组织不仅是能量储存的组织,而且是脂肪代谢的重要内分泌器官[19]。研究表明,在牛和鸡的饲粮中添加VE显著增加其肉中VE含量[20-21]。在本研究中,皮下脂肪组织VE含量随饲粮VE水平的增加而显著增加,这与Lee等[22]研究结果一致。但González-Calvo等[23]的研究表明,饲粮中添加VE后皮下脂肪并未发现有VE的沉积。造成这一差异的原因还未明确,但Álvarez等[24]认为补充VE的动物VE的组织积累取决于剂量和喂食时间。此外,在本研究中,VE添加组对皮下脂肪组织中脂肪酸组成有影响,即降低了SFA(C16∶0和C18∶0)的含量,增加了UFA(C16∶1n7、C18∶1n9c和C18∶3n3)的含量,这种改变对肉品质的提高是有利的。本试验结果与大多数对于羔羊的研究结果[15,25-26]一致。但Khadangi等[12]报道,补充VE的羔羊SFA、MUFA和PUFA的比例都没有改变。补充VE对皮下脂肪组织脂肪酸组成的影响机制尚不清楚,这种研究结果的差异说明我们需要进一步了解VE是如何影响脂肪酸组成。
已有研究表明,VE可通过直接或间接的机制调节信号转导改变基因的表达[27]。VE改变基因表达已经在包括皮下脂肪在内的各种组织和细胞中报道[26,28]。本研究结果表明,补充VE会影响皮下脂肪组织15条脂肪酸代谢相关的信号通路,其中有2条非常重要的代谢通路,即不饱和脂肪酸的生物合成和脂肪酸的生物合成途径。Dervidshi等[28]认为饲粮中添加VE可通过改变与脂肪代谢相关酶的基因表达来改变肉中的脂肪酸组成。在不饱和脂肪酸生物合成中,VE对超长链脂肪酸延伸酶家族(ELOVLs)有重要作用,上调了ELOVL3、ELOVL5基因的表达,下调了ELOVL7、ELOVL6基因的表达。
González-Calvo等[25]研究发现,在羔羊中长期添加(30 d以上)VE可使ELOVL6基因表达量下降,这与本研究结果一致,但关于VE对ELOVL3、ELOVL7、ELOVL5基因表达的影响鲜见报道。ELOVLs是催化长链脂肪酸C12~C16延伸的限速酶。目前已知ELOVLs家族有7个成员,不同的成员对底物延伸具有偏好性[29]。ELOVL6可以催化棕榈酸(C16∶0)合成硬脂酸(C18∶0)[30]。有研究表明,在乳腺上皮细胞过表达ELOVL6基因后,细胞中C18∶0的比例增加[31]。ELOVL7可催化C18∶0的合成,在猪腹部脂肪中,ELOVL7基因是C18∶0含量的候选基因[32]。在本研究中,ELOVL6、ELOVL7基因表达的减少与组织中C18∶0含量的减少的结果是一致的。因此,我们推测VE有可能通过减少ELOVL6、ELOVL7基因的表达从而影响到组织中C18∶0含量。ELOVL3主要催化SFA或MUFA和超长链脂肪酸合成,ELOVL5主要催化PUFA的合成[33-34]。在本研究中,C16∶1、C18∶1n9c、C18∶3n3含量的增加是否与ELOVL3、ELOVL5基因表达量的增加有关有待进一步研究。本研究在脂肪酸合成代谢通路中FASN基因表达量下调,这与Zhang等[35]在肉仔鸡饲粮添加VE后腹部脂肪中FASN基因表达的结果是一致的。FASN是内源性长链饱和脂肪酸合成的关键酶,主要合成C16∶0,也有研究表明,FASN基因表达与脂肪酸(C10∶0、C12∶0、C8∶0、C14∶0、C18∶2、C18∶1)含量相关[36]。在本研究中,FASN基因表达量的减少与C16∶0合成量的减少是一致的,这可能是VE减少了FASN基因表达从而减少了C16∶0合成。此外,与CON组相比,VE500组皮下脂肪中涉及固醇、类固醇、甘油、α-亚麻酸和胆固醇代谢过程一些基因表达量的变化,这些生物过程均与脂肪酸代谢密切相关。有研究证明,VE可能通过抑3-羟基-3-甲基戊二酸单酰辅酶A(HMG-CoA)还原酶来抑制胆固醇的生物合成[37]
在本研究中,脂代谢中有重要作用的信号通路PPAR信号通路、MAPK信号通路、钙信号通路、Apelin信号通路、Wnt信号通路、哺乳动物雷帕霉素靶蛋白(mTOR)信号通路和磷脂酶D信号通路被显著富集,之前的研究发现,VE通过PPARs来影响脂肪酸合成与分解过程,但具体调控机制仍不清楚[38]。其他信号通路以及在山羊皮下脂肪组织中的代谢机制需要进一步研究。总之,本研究发现,VE通过调控脂肪酸生物合成对改善山羊皮下脂肪组织的脂肪酸组成有重要作用,我们找到了调节脂肪酸代谢的关键基因。

4 结论

① 饲粮中添加VE的水平在0~500 IU/(只·d)时,山羊末重、平均日增重、平均日采食量和料重比均无显著差异,但皮下脂肪组织中VE的含量随着饲粮VE水平的增加而增加。
② 饲粮中添加500 IU/(只·d)VE改变了皮下脂肪组织中脂肪酸的组成,具体为总SFA含量减少和总MUFA含量增加。
③ 饲粮中添加500 IU/(只·d)VE可能通过改变皮下脂肪组织中不饱和脂肪酸的生物合成和脂肪酸的生物合成中的ELOVL3、ELOVL5、ELOVL7、ELOVL6和FASN的基因表达来影响脂肪酸的组成,在这个过程中PPAR信号通路、MAPK信号通路和钙信号通路等有重要作用。
[1]
闫素梅, 孟凡珠, 刘树林. 羊肉多不饱和脂肪酸组成的影响因素及其营养调控[J]. 动物营养学报, 2022, 34(10):6379-6387.

DOI

YAN S M, MENG F Z, LIU S L. Influencing factors of polyunsaturated fatty acid composition in mutton and its nutritional regulation[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6379-6387. (in Chinese)

DOI

[2]
WANG B H, LUO Y L, WANG Y, et al. Rumen bacteria and meat fatty acid composition of Sunit sheep reared under different feeding regimens in China[J]. Journal of the Science of Food and Agriculture, 2021, 101(3):1100-1110.

DOI

[3]
薛丽娜, 周胜花. 羊肉膻味物质的影响因素及候选基因研究进展[J]. 山西农业科学, 2020, 48(8):1347-1350.

XUE L N, ZHOU S H. Research progress on influence factors and candidate genes of characteristic flavors substances[J]. Journal of Shanxi Agricultural Sciences, 2020, 48(8):1347-1350. (in Chinese)

[4]
张晋青, 岳度兵, 罗海玲, 等. 日粮中维生素E水平对敖汉细毛羊内脏器官生长发育的影响[J]. 中国畜牧杂志, 2010, 46(17):43-46.

ZHANG J Q, YUE D B, LUO H L, et al. Effect of different levels of vitamin E in diet on organ growth and development of Aohan fine-wool sheep[J]. Chinese Journal of Animal Science, 2010, 46(17):43-46. (in Chinese)

[5]
KIM H K, HAN S N. Vitamin E:regulatory role on gene and protein expression and metabolomics profiles[J]. IUBMB Life, 2019, 71(4):442-455.

DOI

[6]
王爽, 陈伟, 黄雪冰, 等. 饲粮维生素E添加水平对蛋种鸭繁殖性能及子代雏鸭生长性能、抗氧化性能的影响[J]. 动物营养学报, 2022, 34(12):7781-7789.

DOI

WANG S, CHEN W, HUANG X B, et al. Effects of dietary vitamin E supplemental level on reproductive performance of laying duck breeders and growth performance and antioxidant performance of offspring ducklings[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7781-7789. (in Chinese)

DOI

[7]
RIPOLL G, GONZÁLEZ-CALVO L, MOLINO F, et al. Effects of finishing period length with vitamin E supplementation and alfalfa grazing on carcass color and the evolution of meat color and the lipid oxidation of light lambs[J]. Meat Science, 2013, 93(4):906-913.

DOI PMID

[8]
ZHAO T Z, LUO H L, ZHANG Y W, et al. Effect of vitamin E supplementation on growth performance,carcass characteristics and intramuscular fatty acid composition of longissimus dorsi muscle in Tan’ sheep[J]. Chilean Journal of Agricultural Research, 2013, 73(4):358-365.

DOI

[9]
LIU K, GE S Y, LUO H L, et al. Effects of dietary vitamin E on muscle vitamin E and fatty acid content in Aohan fine-wool sheep[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):21.

DOI PMID

[10]
BERTHELOT V, BROUDISCOU L, SCHMIDELY P. Effect of vitamin E supplementation on fatty acid composition of muscle and adipose tissues of indoor lambs with special attention on rumen-derived trans monounsaturated fatty acids[J]. Meat Science, 2014, 96(3):1281-1288.

DOI PMID

[11]
GONZÁLEZ-CALVO L, DERVISHI E, JOY M, et al. Genome-wide expression profiling in muscle and subcutaneous fat of lambs in response to the intake of concentrate supplemented with vitamin E[J]. BMC Genomics, 2017, 18(1):92.

DOI

[12]
KHADANGI F, AZZI A. Vitamin E-the next 100 years[J]. IUBMB Life, 2019, 71(4):411-415.

[13]
孙艳发, 张敏, 李焰, 等. 维生素E对动物脂肪代谢调控的研究进展[J]. 中国畜牧杂志, 2015, 51(13):82-85.

SUN Y F, ZHANG M, LI Y, et al. Advances in vitamin E regulation of lipid metabolism in animals[J]. Chinese Journal of Animal Science, 2015, 51(13):82-85. (in Chinese)

[14]
AZZI A, GYSIN R, KEMPNÁ P, et al. Regulation of gene expression by alpha-tocopherol[J]. Biological Chemistry, 2004, 385(7):585-591.

PMID

[15]
罗海玲, 孟慧, 朱虹, 等. 日粮维生素E添加水平对羊肉品质的影响[C]// 中国畜牧兽医学会2008年学术年会暨第六届全国畜牧兽医青年科技工作者学术研讨会论文集. 广州: 中国畜牧兽医学会, 2008:159-162.

LUO H L, MENG H, ZHU H, et al. Effect of dietary vitamin E supplementation level on mutton quality[C]// Proceedings of the 2008 Annual Academic Conference of the Chinese Society of Animal Husbandry and Veterinary Medicine and the 6th National Symposium of Young Scientific and Technological Workers of Animal Husbandry and Veterinary Medicine. Guangzhou: Chinese Association of Animal Science and Veterinary Medicine, 2008:159-162. (in Chinese)

[16]
中华人民共和国农业部. 肉羊饲养标准:NY/T 816—2004[S]. 北京: 中国农业出版社, 2004.

The Ministry of Agriculture of the People’s Republic of China. Feeding standard of meat-producing sheep and goats:NY/T 816—2004[S]. Beijing: China Agriculture Press, 2004. (in Chinese)

[17]
张宏福. 动物营养参数与饲养标准[M]. 2版. 北京: 中国农业出版社, 2010.

ZHANG H F. Nutrition parameters and feeding standard for animals[M]. 2nd ed. Beijing: China Agriculture Press, 2010. (in Chinese)

[18]
孙庆雨, 杨海明, 徐学安, 等. 饲粮添加不同水平维生素E对29-63日龄江南白鹅生长性能、免疫性能和抗氧化性能的影响[J]. 动物营养学报, 2022, 34(4):2425-2434.

DOI

SUN Q Y, YANG H M, XU X A, et al. Effects of dietary vitamin E supplemental level on growth performance,immune capacity and antioxidant capacity of Jiangnan white goslings from 29 to 63 days of age[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2425-2434. (in Chinese)

[19]
DERVISHI E, GONZÁLEZ-CALVO L, BLANCO M, et al. Gene expression and fatty acid profiling in Longissimus thoracis muscle,subcutaneous fat,and liver of light lambs in response to concentrate or alfalfa grazing[J]. Frontiers in Genetics, 2019, 10:1070.

DOI

[20]
BOU R, GRIMPA S, BAUCELLS M D, et al. Dose and duration effect of α-tocopheryl acetate supplementation on chicken meat fatty acid composition,tocopherol content,and oxidative status[J]. Journal of Agricultural and Food Chemistry, 2006, 54(14):5020-5026.

DOI

[21]
O’GRADY M N, MONAHAN F J, FALLON R J, et al. Effects of dietary supplementation with vitamin E and organic selenium on the oxidative stability of beef[J]. Journal of Animal Science, 2001, 79(11):2827-2834.

PMID

[22]
LEE J H, WALLER J C, MELTON S L, et al. Incorporation of α-tocopherol and linoleic acid in fresh lambs by feeding chemically treated dietary supplements containing DL-α-tocopherol acetate and sunflower oil[J]. Journal of Agricultural and Food Chemistry, 2006, 54(2):568-573.

DOI

[23]
GONZÁLEZ-CALVO L, JOY M, ALBERTI C, et al. Effect of finishing period length with α-tocopherol supplementation on the expression of vitamin E-related genes in the muscle and subcutaneous fat of light lambs[J]. Gene, 2014, 552(2):225-233.

DOI

[24]
ÁLVAREZ I, DE LA FUENTE J, DÍAZ M T, et al. Estimation of α-tocopherol concentration necessary to optimise lamb meat quality stability during storage in high-oxygen modified atmosphere using broken-line regression analysis[J]. Animal, 2008, 2(9):1405-1411.

DOI PMID

[25]
GONZÁLEZ-CALVO L, JOY M, BLANCO M, et al. Effect of vitamin E supplementation or alfalfa grazing on fatty acid composition and expression of genes related to lipid metabolism in lambs[J]. Journal of Animal Science, 2015, 93(6):3044-3054.

DOI

[26]
ZINGG J M. Vitamin E:a role in signal transduction[J]. Annual Review of Nutrition, 2015, 35:135-173.

DOI

[27]
GERALD R, JENNIFER M, PATRICIA H, et al. Gene-regulatory activity of alpha-tocopherol[J]. Molecules, 2010, 15(3):1746-1761.

DOI PMID

[28]
DERVISHI E, SERRANO C, JOY M, et al. The effect of feeding system in the expression of genes related with fat metabolism in semitendinous muscle in sheep[J]. Meat Science, 2011, 89(1):91-97.

DOI PMID

[29]
李翠翠. 鸡超长链脂肪酸延伸酶(ELOVL)家族的生物学特性和表达调控研究[D].硕士学位论文. 郑州: 河南农业大学, 2018.

LI C C. Biological characterization and expression regulation of elongases of very long chain fatty acids (ELOVL) gene family in chicken (Gallus gallus)[D].Master’s Thesis. Zhengzhou: Henan Agricultural University, 2018. (in Chinese)

[30]
SHI H B, WU M, ZHU J J, et al. Fatty acid elongase 6 plays a role in the synthesis of long-chain fatty acids in goat mammary epithelial cells[J]. Journal of Dairy Science, 2017, 100(6):4987-4995.

DOI PMID

[31]
吴敏. 奶山羊乳腺上皮细胞超长链脂肪酸延伸酶6(ELOVL6)基因的超表达与干扰研究[D].硕士学位论文. 杨凌: 西北农林科技大学, 2014.

WU M. The research of over expression and RNA interference of ELOVL6 gene in dairy goat mammary epithelial cell[D].Master’s Thesis. Yangling: Northwest A&F University, 2014. (in Chinese)

[32]
张万昌. 猪肉脂肪酸组成的遗传解析[D].博士学位论文. 南昌: 江西农业大学, 2016.

ZHANG W C. Dissection of genetic architecture of fatty acid composition in pork[D].Ph.D.Thesis. Nanchang: Jiangxi Agricultural University, 2016. (in Chinese)

[33]
WESTERBERG R, MÅNSSON J E, GOLOZOUBOVA V, et al. ELOVL3 is an important component for early onset of lipid recruitment in brown adipose tissue[J]. Journal of Biological Chemistry, 2006, 281(8):4958-4968.

DOI PMID

[34]
郭鹏程, 戴珊珊, 杨浩然, 等. ELOVL5基因遗传变异与中国荷斯坦奶牛乳质性状的关联分析及功能验证[J]. 中国兽医学报, 2017, 37(4):741-745.

GUO P C, DAI S S, YANG H R, et al. ELOVL5 gene variants reveal significant effects of milk quality in Holstein cows[J]. Chinese Journal of Veterinary Science, 2017, 37(4):741-745. (in Chinese)

[35]
ZHANG M, LI J L, ZHU Y T, et al. Effect of vitamin E supplementation on deposition and gene expression profiling of abdominal fat in broiler chickens[J]. The Journal of Poultry Science, 2021, 58(1):40-50.

DOI

[36]
沈冰蕾, 韩硕, 杨卓尼娜, 等. FASN基因的功能及调控机制研究进展[J]. 黑龙江八一农垦大学学报, 2018, 30(3):27-34.

SHEN B L, HAN S, YANG Z N N, et al. Study progress on the function and regulatory mechanism of FASN gene[J]. Journal of Heilongjiang Bayi Agricultural University, 2018, 30(3):27-34. (in Chinese)

[37]
GEORGIADI A, KERSTEN S. Mechanisms of gene regulation by fatty acids[J]. Advances in Nutrition, 2012, 3(2):127-134.

DOI PMID

[38]
DE PASCALE M C, BASSI A M, PATRONE V, et al. Increased expression of transglutaminase-1 and PPARγ after vitamin E treatment in human keratinocytes[J]. Archives of Biochemistry and Biophysics, 2006, 447(2):97-106.

DOI

文章导航

/