研究论文

谷氨酰胺诱导小鼠肝脏细胞自噬相关蛋白质和氨基酸含量变化的研究

  • 冯蕾 ,
  • 刘伟 ,
  • 张宇 ,
  • 胡志勇 , *
展开
  • 山东农业大学动物科技学院,泰安 271018
*胡志勇,副教授,硕士生导师,E-mail:

冯 蕾(1997—),女,山东临沂人,博士研究生,研究方向为反刍动物营养生理。E-mail:

Copy editor: 陈 鑫

收稿日期: 2022-11-18

  网络出版日期: 2023-05-11

基金资助

国家自然科学基金项目(31772624)

国家自然科学基金项目(32172760)

Glutamine-Induced Changes in Protein and Amino Acid Contents Associated with Autophagy in Mouse Liver Cells

  • FENG Lei ,
  • LIU Wei ,
  • ZHANG Yu ,
  • HU Zhiyong , *
Expand
  • College of Animal Science and Technology, Shandong Agricultural University, Tai’an 271018, China
*associate professor, E-mail:

Received date: 2022-11-18

  Online published: 2023-05-11

摘要

本试验旨在通过探究谷氨酰胺(Gln)的不同浓度以及不同时间饥饿处理对小鼠肝脏细胞自噬程度的影响,为Gln在家畜上的应用提供基础的数据支撑。本试验选取小鼠肝脏细胞系(NCTC1469)为试验材料,在DMEM高糖培养基培养至密度约为90%。Gln浓度处理时,进行无血清饥饿培养12 h,12 h后分为8个处理,Gln浓度分别为0、2%、4%、8%、16%、32%、64%和100%,处理细胞12 h;饥饿时间处理时,进行无血清饥饿培养12 h,12 h后分为8个处理,饥饿时间分别为0、0.5、1.0、2.0、4.0、8.0、12.0和24.0 h,进行无Gln处理。结果表明:Gln浓度处理中,哺乳动物雷帕霉素靶蛋白(mTOR)蛋白表达量均随着Gln浓度增加呈上升趋势,真核生物起始因子2α(eIF2α)、Unc-51样激酶1-555(ULK1-555)蛋白表达量以及微管相关蛋白1轻链3B(LC3B)Ⅱ型与Ⅰ型的比值(LC3BⅡ/Ⅰ)、转录激活因子4(ATF4)的蛋白表达量均随着Gln浓度的增加而呈现下降趋势,且R2均大于0.5;饥饿时间处理中,ATF4、P62和mTOR蛋白表达量均随着Gln饥饿时间的延长而呈现上升趋势,R2均大于0.5;Gln浓度处理中,Gln浓度为0时,组氨酸(His)、甘氨酸(Gly)、苏氨酸(Thr)、赖氨酸(Lys)、酪氨酸(Tyr)、蛋氨酸(Met)、缬氨酸(Val)、异亮氨酸(Ile)、亮氨酸(Leu)、苯丙氨酸(Phe)和色氨酸(Trp)在细胞内含量显著高于其他处理(P<0.05);饥饿时间处理中,丝氨酸(Ser)、Thr、Tyr、Met、Val、Ile、Leu、Phe、Trp在细胞内含量随饥饿时间增加而显著增加(P<0.05)。综上所述,小鼠肝脏细胞系(NCTC1469)用不同浓度Gln处理12 h,Gln浓度增加会抑制自噬;经不同饥饿时间处理,因为一般性调控阻遏蛋白激酶2(GCN2)途径调控细胞摄取外源氨基酸使mTOR再激活,总体来说自噬程度随饥饿时间延长而减弱。

本文引用格式

冯蕾 , 刘伟 , 张宇 , 胡志勇 . 谷氨酰胺诱导小鼠肝脏细胞自噬相关蛋白质和氨基酸含量变化的研究[J]. 动物营养学报, 2023 , 35(5) : 3313 -3322 . DOI: 10.12418/CJAN2023.307

Abstract

The aim of this experiment was to investigate the effects of different concentrations of glutamine (Gln) and different starvation time treatment on the degree of autophagy in mouse liver cells, and to provide basic data to support the application of Gln on domestic animals. In this experiment, mouse liver cell line (NCTC1469) was selected as the test material and cultured in DMEM high sugar medium until the density was about 90%. For Gln concentration treatment, serum-free starvation culture was performed for 12 h. After 12 h, the cells were divided into 8 treatments with Gln concentrations of 0, 2%, 4%, 8%, 16%, 32%, 64% and 100% for 12 h. For starvation time treatment, serum-free starvation culture was performed for 12 h. After 12 h, the cells were divided into 8 treatments with starvation times of 0, 0.5, 1.0, 2.0, 4.0, 8.0, 12.0 and 24.0 h for Gln-free treatment. The results showed that the mammalian target protein of rapamycin (mTOR) pathway protein expression all showed an increasing trend with the increase of Gln concentration in Gln treatment, and the protein expression levels of eukaryotic initiation factor 2α (eIF2α), ULK1-555 and the ratio of microtubule-associated protein 1 light chain 3B (LC3B) type Ⅱ to type Ⅰ ( LC3BⅡ/Ⅰ), and transcription activation factor 4 (ATF4) all showed a decreasing trend with increasing Gln concentration, and R2 were all greater than 0.5; ATF4, P62 and mTOR protein expression levels all showed an increasing trend with the increase of starvation time, with R2 was greater than 0.5; in the Gln concentration treatment, the intracellular contents of histidine (His), glycine (Gly), threonine (Thr), lysine (Lys), tyrosine (Tyr), methionine (Met), valine (Val), isoleucine (Ile), leucine (Leu), phenylalanine (Phe) and tryptophan (Trp) were significantly higher at 0 Gln concentration than other treatments (P<0.05); the intracellular contents of serine (Ser), Thr, Tyr, Met, Val, Ile, Leu, Phe and Trp increased significantly (P<0.05) with increasing starvation time in the time treatment. In conclusion, mouse liver cell line (NCTC1469) is treated with different concentrations of Gln for 12 h, the increase of Gln concentration inhibits autophagy; after different time starvation treatments, the GCN2 pathway regulate cellular uptake of exogenous amino acids to reactivate mTOR, overall the degree of autophagy is diminished with increasing starvation time.

细胞自噬参与细胞内蛋白质更新翻译、吞噬衰老细胞内容物,是营养缺乏期间的细胞存活机制[1],几乎所有真核生物中的胞质成分可以通过自噬分解,保证细胞内成分被循环利用,维持细胞稳态[2]。自噬降解释放出的游离氨基酸,可以重新用于蛋白质的从头合成[3],胞质通过自噬重新利用待降解物质,是细胞内养分的重要来源,对保持应激条件下的细胞存活以及动物机体稳态意义重大[4]。营养物质缺乏、热应激、炎症、缺氧等都是自噬的触发条件,细胞会对其产生应答从而极大地增强自噬,而这些因素中不论是对酵母菌或哺乳动物来说,营养物质不足的刺激因素更强[2]。充足的营养条件可以保证在正常的生理条件下的低水平基础自噬,这在细胞发育和分化、预防神经变性、抗衰老和抑制肿瘤、正常的细胞蛋白和细胞器周转方面十分重要。营养缺乏时,为维持氨基酸水平,导致自噬水平升高,这一分解代谢过程对满足细胞的营养需要很重要[2]
随着细胞自噬的深入研究,近年来,也有不少研究将自噬与动物营养学相联系,探究家禽、家畜在不同营养条件下的细胞自噬[5],目前关于自噬的研究多集中在猪[6-7]、牛[8-9]、兔[10-11]上,试验处理的营养物质变量多为氨基酸和生长因子。在已发表的文献中,不同试验所研究的物种、组织不同,氨基酸处理不同,得出的氨基酸和生长因子对自噬影响各不相同[5-11]。动物体内营养状况与细胞自噬密切相关,最常见的就是氨基酸与细胞自噬的关系。氨基酸是蛋白质合成的基本单位,是动物生长发育所必需的。哺乳动物雷帕霉素靶蛋白(mTOR)是一种保守的丝氨酸/苏氨酸激酶[12],整合了来自各种代谢刺激的信号。mTOR形成结构和功能完全不同的mTOR复合物1/2(mTORC1/2),mTORC1通过感知到细胞内外氨基酸等营养物质的变化作出响应调控自噬或细胞生长,而mTORC1对不同氨基酸感知能力不同,响应途径也不相同,现在针对亮氨酸(Leu)、谷氨酰胺(Gln)和精氨酸(Arg)激活mTORC1途径的研究较多,这3种氨基酸已被确定为mTORC1的有效激活剂[13-14]。其中Gln作为一种营养型非必需氨基酸,在维护机体健康方面起着重要作用[15]。Gln是小肠必需的养分物质,在提高肠道和其他重要器官中细胞的存活率方面均具有重要作用。目前关于Gln对细胞自噬影响的研究,研究对象多为小鼠[16]、断奶犊牛[9]等,处理多为不同浓度Gln灌注或不同时间的Gln饥饿处理,本研究选取小鼠肝脏细胞系,将细胞进行最长时达24 h的Gln饥饿,从Gln浓度和饥饿时间2个角度研究Gln对小鼠肝脏细胞自噬程度的影响,为Gln在家禽、家畜上的应用以及合理的营养调控提供参考。细胞外Gln作为一种饥饿诱导因子通过调控mTORC1活性,从而调控细胞自噬的发生,细胞通过mTORC1来调控同化或异化代谢保持细胞生存最优状态,mTORC1可以调控细胞生长和自噬2条途径。当细胞内氨基酸充足时,mTORC1处于激活状态,维持细胞正常生长等同化状态,一旦Gln等缺乏时,mTORC1活性受到抑制,激活自噬途径等异化状态,但不清楚如何感知氨基酸,正因为mTOR靶标在细胞生长代谢发挥的重要作用,而被广泛研究。本研究以细胞游离氨基酸以及自噬相关蛋白质的变化为切入点,通过研究不同浓度Gln和饥饿时间对小鼠肝脏细胞游离氨基酸的变化规律,进而探究其对小鼠肝脏细胞自噬机制的影响。

1 材料与方法

1.1 试验设计

本试验选取小鼠肝脏细胞系(NCTC1469)为试验材料,在DMEM高糖培养基培养至密度约为90%,Gln浓度处理时,进行无血清饥饿培养12 h,12 h后分为8个处理,Gln浓度分别为0、2%、4%、8%、16%、32%、64%和100%,处理细胞12 h;饥饿时间处理时,进行无血清饥饿培养12 h,12 h后分为8个处理,饥饿时间分别为0、0.5、1.0、2.0、4.0、8.0、12.0和24.0 h,进行无Gln处理。

1.2 样品采集

Gln浓度处理和饥饿时间处理均将细胞培养至密度约为90%,使用细胞培养液废液抽取吸引泵吸除培养基,使用磷酸盐缓冲液(PBS)进行清洗后加入5 mL胰酶[含乙二胺四乙酸(EDTA)]进行消化,在显微镜下观察细胞处于悬浮状态时加入等体积的胎牛血清中止消化,使用移液枪进行吹打并且转移至15 mL离心管内离心5 min,弃掉上清液,得到细胞样品,放入液氮速冻,保存至-80 ℃冰箱,进行免疫印迹(Western blot)检测以及游离氨基酸含量的测定。

1.3 指标测定与分析

1.3.1 Western blot

通过Western blot检测细胞内蛋白质含量。将样品于4 ℃下解冻,先匀浆后超声破碎,在4 ℃下静置5 min,然后4 ℃ 12 000 r/min离心5 min,取上清液转移至新标号的1.5 mL离心管中,从每管样品中移出2 μL至新标号的小离心管中,加入8 μL PBS,配制成点样的样品。将蛋白标准品和目的蛋白样品点样于96孔板中,放置于37 ℃恒温箱孵育30 min。孵育后,设定酶标仪波长为570 nm,测定其吸光度(OD)值。根据标准品的OD值与浓度值绘制标准曲线,计算目标蛋白的总蛋白质浓度,并配制成等浓度的蛋白样品,浓度为2 μg/μL。使用碧云天凝胶配制试剂盒制备分离胶和浓缩胶,将蛋白样品金属浴100 ℃下变性10 min后通过十二烷基硫酸钠-聚丙烯酰胺凝胶(SDS-PAGE)电泳,转至聚偏二氟乙烯(PVDF)膜,于4 ℃下孵育一抗12 h,使用TBS+Tween(TBST)缓冲液清洗3次,每次10 min,于4 ℃孵育二抗4 h,使用TBST缓冲液清洗3次,每次10 min,得到蛋白条带显影。使用Fusion软件对蛋白条带进行相对定量,所有Western blot数据均通过同一孔中的内参蛋白进行标准化。内参蛋白为3-磷酸甘油醛脱氢酶(GAPDH),磷酸化蛋白/总蛋白或目标蛋白/内参蛋白的比率为目标蛋白表达情况。

1.3.2 细胞内游离氨基酸含量测定

Glu浓度处理和饥饿时间处理得到的细胞样本进行研磨破碎,加入500 μL水,500 μL甲醇。振荡提取0.5 h。4 ℃ 12 000 r/min离心5 min,取20 μL上清液转移至标记好标签的1.5 mL离心管中,加入5 μL内标,40 μL异丙醇(1%甲酸),旋涡振荡60 min。4 ℃ 12 000 r/min离心5 min,取上层溶液10 μL,置于1.5 mL离心管中,加入70 μL缓冲盐溶液,混匀后加入20 μL衍生试剂。50 ℃进行衍生10 min。衍生后,加水稀释5倍,采用UPLC I-Class XEVO TQS-Micro超高效液相色谱-三重四级杆质谱仪测定游离氨基酸含量。测得的氨基酸含量/样品蛋白含量的比率为细胞内游离氨基酸含量,Gln浓度处理和饥饿时间处理的氨基酸含量数据分别通过0浓度和0 h处理的氨基酸含量进行归一化。

1.4 统计分析

试验数据由Excel 2021处理后,采用R 4.0.3软件对数据进行单因素方差分析和拟合分析。使用Duncan氏法进行各处理间比较。数据表示为平均值和均值标准误(SEM),P<0.01为差异极显著,P<0.05为差异显著。

2 结果与分析

2.1 Gln浓度处理对自噬相关蛋白表达量的影响

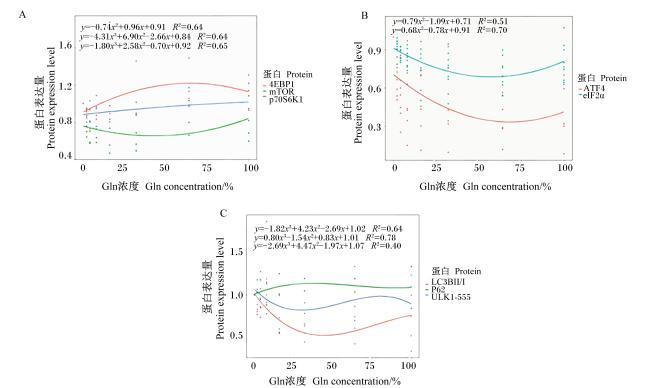
图1-a可知,mTOR、核糖体S6激酶1(p70S6K1)以及真核起始因子4E结合蛋白1(4EBP1)的蛋白表达量均随着Gln浓度的增加而呈现上升趋势,且R2分别为0.64、0.65和0.64。由图1-b可知,真核生物起始因子2α(eIF2α)以及转录激活因子4(ATF4)的蛋白表达量均随着Gln浓度的增加而呈现下降趋势,且R2分别为0.70、0.51。由图1-c可知,P62和Unc-51样激酶1-555(ULK1-555)的蛋白表达量分别随着Gln浓度的增加而呈现下降的趋势,且R2分别为0.78、0.64。微管相关蛋白1轻链3B(LC3B)Ⅱ型与Ⅰ型的比值(LC3BⅡ/Ⅰ)分别随着Gln浓度的增加而呈现上升趋势,且R2为0.64。
图1 Gln浓度处理对自噬相关蛋白表达量的影响

4EBP1:真核起始因子4E结合蛋白1 eukaryotic initiation factor 4E binding protein 1;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target protein of rapamycin;p70S6K1:核糖体S6激酶1 ribosome S6 kinase 1;ATF4: 转录激活因子4 transcription activator 4;eIF2α:真核生物起始因子2α eukaryotic initiation factor 2α;LC3BⅡ/Ⅰ:微管相关蛋白1轻链3B(LC3B)Ⅱ型与Ⅰ型的比值 ratio of microtubule-associated protein 1 light chain 3B (LC3B) type Ⅱ to type Ⅰ;ULK1-555:Unc-51样激酶1-555 Unc-51-like kinase 1-555。图2同 the same as Fig.2
a:mTOR通路蛋白拟合趋势;b:GCN2通路蛋白拟合趋势;c:自噬标志物拟合趋势。图2同。a: fitting trend of mTOR pathway proteins; b; fitting trend of GCN2 pathway proteins; c: fitting trend of autophagy markers. The same as Fig.2.

Fig.1 Effects of Gln concentration treatment on expression of autophagy-related proteins

2.2 饥饿时间处理对自噬相关蛋白表达量的影响

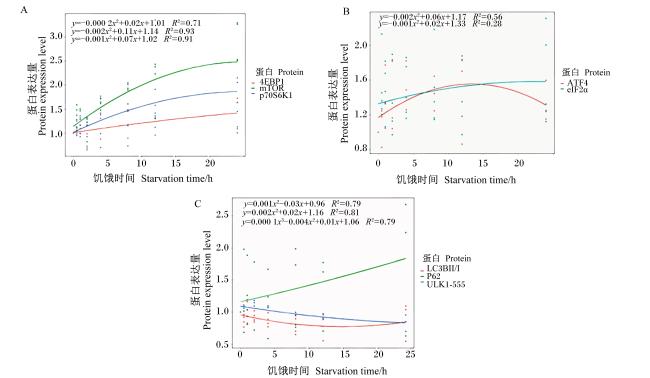
图2-a可知,mTOR、p70S6K1以及4EBP1的蛋白表达量均随着饥饿时间的延长而呈现上升趋势,且R2分别为0.93、0.91、0.71。由图2-b可知,ATF4以及eIF2α的蛋白表达量均随着饥饿时间的延长而呈现上升趋势,且R2分别为0.56、0.28。由图2-c可知,P62的蛋白表达量随着饥饿时间的延长而呈现上升的趋势,LC3BⅡ/Ⅰ和ULK1-555的蛋白表达量分别随着饥饿时间的延长而呈现下降的趋势,且R2均为0.79。
图2 饥饿时间处理对自噬相关蛋白表达量的影响

Fig.2 Effects of starvation time treatment on expression level of autophagy-related proteins

2.3 Gln浓度处理对细胞内游离氨基酸含量的影响

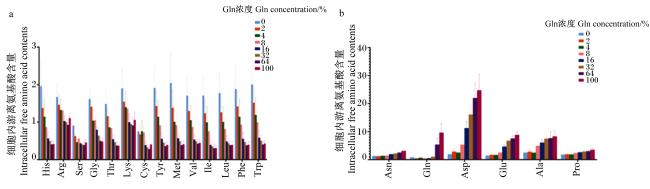
图3可知,随着Gln浓度的增加,细胞内组氨酸(His)、精氨酸(Arg)、丝氨酸(Ser)、甘氨酸(Gly)、苏氨酸(Thr)、赖氨酸(Lys)、半胱氨酸(Cys)、酪氨酸(Tyr)、蛋氨酸(Met)、异亮氨酸(Ile)、亮氨酸(Leu)、苯丙氨酸(Phe)、色氨酸(Trp)和缬氨酸(Val)等含量下降。其中,由表1可知,除了Cys以外,其他氨基酸均被Gln浓度显著影响(P<0.05)。随着Gln浓度的增加,细胞内的天冬酰胺(Asn)、谷氨酰胺(Gln)、天冬氨酸(Asp)、谷氨酸(Glu)和丙氨酸(Ala)含量显著增加(P<0.05)。
图3 Gln浓度处理对细胞内游离氨基酸含量的影响

a: 随Gln浓度增加细胞内含量降低的氨基酸;b: 随Gln浓度增加细胞内含量增加的氨基酸。

Fig.3 Effects of Gln concentration treatment on intracellular free amino acids contents

a:amino acids that decrease intracellular content with increasing Gln concentration; b: amino acids that increase intracellular content with increasing Gln concentration.

表1 Gln浓度处理对细胞内游离氨基酸含量的影响

Table 1 Effects of Gln concentration treatment on intracellular free amino acid contents

项目
Items
谷氨酰胺浓度Gln concentration/% SEM P
P-value
0 2 4 8 16 32 64 100
组氨酸His 1.00a 0.73b 0.54c 0.47c 0.29d 0.27d 0.23d 0.24d 0.05 <0.001
精氨酸Arg 1.00 0.90 0.81 0.82 0.65 0.65 0.58 0.70 0.09 0.050
天冬酰胺Asn 1.00b 0.93b 1.13b 1.15b 1.55ab 1.81ab 2.09ab 2.61a 0.30 0.010
谷氨酰胺Gln 1.00b 0.51b 0.74b 0.61b 0.62b 1.68b 7.50ab 13.71a 2.62 0.020
丝氨酸Ser 1.00a 0.69ab 0.52b 0.62b 0.48b 0.45b 0.44b 0.52b 0.08 0.004
甘氨酸Gly 1.00a 0.92a 0.61bc 0.68b 0.51bcd 0.40cd 0.31d 0.30d 0.07 <0.001
天冬氨酸Asp 1.00b 1.68b 1.41b 3.40b 7.24ab 9.85ab 13.63a 14.21a 2.40 0.003
谷氨酸Glu 1.00d 1.25d 1.20d 1.90cd 3.53bc 4.99ab 5.45ab 6.44a 0.58 <0.001
苏氨酸Thr 1.00a 0.82a 0.56bc 0.60b 0.36cd 0.29d 0.25d 0.25d 0.06 <0.001
丙氨酸Ala 1.00b 1.19b 1.14b 2.41ab 2.80ab 3.24a 3.15a 3.60a 0.50 0.006
脯氨酸Pro 1.00 1.10 1.08 1.46 1.55 1.75 1.76 2.02 0.27 0.120
赖氨酸Lys 1.00a 0.85ab 0.73bcd 0.77abc 0.55cd 0.53cd 0.50d 0.58cd 0.07 0.001
半胱氨酸Cys 1.00 1.10 1.01 1.20 0.58 0.47 0.45 0.70 0.24 0.200
酪氨酸Tyr 1.00a 0.79b 0.56c 0.50c 0.29d 0.24d 0.19d 0.22d 0.06 <0.001
蛋氨酸Met 1.00a 0.71b 0.49c 0.47c 0.29d 0.25d 0.20d 0.22d 0.05 <0.001
缬氨酸Val 1.00a 0.79b 0.58c 0.53c 0.31d 0.29d 0.24d 0.27d 0.05 <0.001
异亮氨酸Ile 1.00a 0.75b 0.53c 0.44c 0.21d 0.20d 0.16d 0.18d 0.06 <0.001
亮氨酸Leu 1.00a 0.72b 0.53c 0.46c 0.27d 0.25d 0.21d 0.23d 0.05 <0.001
苯丙氨酸Phe 1.00a 0.79b 0.57c 0.52c 0.30d 0.25d 0.21d 0.22d 0.06 <0.001
色氨酸Trp 1.00a 0.80b 0.57c 0.51c 0.30d 0.26d 0.21d 0.23d 0.05 <0.001

2.4 饥饿时间处理对细胞内游离氨基酸含量的影响

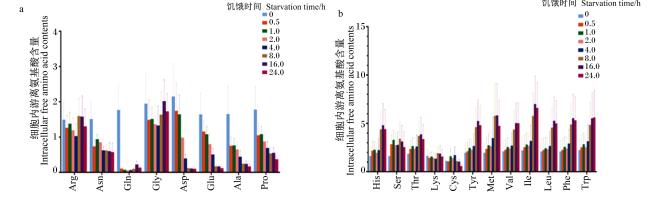
图4可知,随着饥饿时间的增加,Arg、Asn、Gln、Gly、Asp、Glu、Ala和Pro的含量下降。其中由表2可知,Gln饥饿0 h处理的Asn、Gln、Asp、Glu、Ala和Pro的含量显著高于其他处理(P<0.05),而His、Ser、Thr和Lys等12种必需氨基酸的含量增加;饥饿时间处理对Thr、Tyr、Met、Val、Ile、Leu、Phe和Trp的含量有显著影响(P<0.05)。
图4 饥饿时间处理对细胞内游离氨基酸含量的影响

a:随饥饿时间增加细胞内含量降低的的氨基酸;b:随饥饿时间增加细胞内含量增加的氨基酸。

Fig.4 Effects of starvation time treatment on intracellular free amino acid contents

a:amino acids that decrease intracellular content with increasing starvation time; b:amino acids that increase intracellular content with increasing starvation time.

表2 饥饿时间处理对细胞内游离氨基酸含量的影响

Table 2 Effects of starvation time treatment on intracellular free amino acid contents

项目
Items
饥饿时间Starvation time/h SEM P
P-value
0 0.5 1.0 2.0 4.0 8.0 12.0 24.0
组氨酸His 1.00 1.49 1.77 1.29 1.50 3.31 3.47 3.65 0.83 0.170
精氨酸Arg 1.00 0.88 0.99 0.82 0.69 1.09 1.05 0.86 0.09 0.110
天冬酰胺Asn 1.00a 0.51bcd 0.69b 0.63bc 0.45bcd 0.43cd 0.38d 0.35d 0.07 <0.001
谷氨酰胺Gln 1.00a 0.06b 0.04b 0.03b 0.03b 0.06b 0.16b 0.09b 0.04 <0.001
丝氨酸Ser 1.00 1.85 2.21 1.65 1.63 1.96 1.76 1.34 0.24 0.070
甘氨酸Gly 1.00 0.80 0.92 0.74 0.72 0.92 1.19 1.01 0.19 0.680
天冬氨酸Asp 1.00a 0.80b 0.83b 0.44c 0.20d 0.07e 0.06e 0.06e 0.04 <0.001
谷氨酸Glu 1.00a 0.75b 0.73b 0.49c 0.31d 0.11e 0.12e 0.08e 0.05 <0.001
苏氨酸Thr 1.00b 1.33ab 1.58ab 1.23ab 1.40ab 2.04a 2.07a 1.85ab 0.20 0.010
丙氨酸Ala 1.00a 0.54b 0.56b 0.46bc 0.29cd 0.17d 0.17d 0.12d 0.07 <0.001
脯氨酸Pro 1.00a 0.61bc 0.68b 0.54bc 0.42cd 0.32d 0.34d 0.23d 0.06 <0.001
赖氨酸Lys 1.00 0.90 1.03 0.90 0.84 1.23 1.10 0.92 0.09 0.150
半胱氨酸Cys 1.00 0.95 1.37 1.26 1.46 0.96 0.90 0.50 0.36 0.640
酪氨酸Tyr 1.00c 1.17c 1.45bc 1.21c 1.39bc 2.53ab 2.92a 2.77a 0.35 0.003
蛋氨酸Met 1.00b 1.23b 1.50b 1.28b 1.57b 2.77a 2.81a 2.36a 0.23 <0.001
缬氨酸Val 1.00b 1.19b 1.43ab 1.25b 1.37ab 2.29ab 2.70a 2.76a 0.35 0.010
异亮氨酸Ile 1.00a 1.34a 1.56a 1.39a 1.61a 3.30a 3.96a 4.06a 0.72 0.030
亮氨酸Leu 1.00a 1.19a 1.35a 1.22a 1.34a 2.61a 2.94a 2.96a 0.45 0.020
苯丙氨酸Phe 1.00c 1.16c 1.43bc 1.20c 1.45bc 2.62ab 2.93a 2.88a 0.37 0.004
色氨酸Trp 1.00c 1.17c 1.46bc 1.15c 1.40bc 2.31ab 2.65a 2.67a 0.29 0.002

3 讨论

3.1 Gln浓度对小鼠肝脏细胞自噬的影响

检测mTOR通路蛋白质p70S6K1和4EBP1是自噬研究中的常用手段[17],活化的mTORC1激活p70S6K1[18-19],促进翻译。虽氨基酸与生长因子激活mTORC1的途径不同,但氨基酸充足是生长因子激活mTORC1的先决条件[2],可能涉及不同的mTORC1激活机制:如Gln产生的α-酮戊二酸可以介导急性氨基酸饥饿后Leu诱导的mTORC1激活,即氨基酸饥饿后立马启动的自噬;再次,Gln产生的非必需氨基酸(NEAA)则介导长期氨基酸饥饿时依赖自噬的mTORC1重激活。而且在Gln代谢过程中通过转氨作用补充NEAA,即使必需氨基酸(EAA)不足,也可以恢复mTOR的活性,Gln作为非常重要的NEAA,可以作为NEAA中的有限氮源供体,所以可以理解补充Gln对自噬和mTOR的重要性。结果表明,随Gln浓度升高,4EBP1、mTOR和P70S6K1蛋白表达量总体呈上升趋势,随着Gln浓度的增加,自噬程度总体减弱,这说明Gln浓度的提高使细胞外环境营养物质充足,有利于细胞进行生长更新而抑制自噬。在哺乳动物中,一般性调控阻遏蛋白激酶2(GCN2)途径通过转录因子ATF4维持氨基酸稳态[20]。由图1-b可知,随着Gln浓度的增加,GCN2通路蛋白表达量均下降,说明随细胞外Gln浓度升高,细胞外环境处于营养富足状态,细胞不需要再通过额外上调GCN2通路蛋白表达摄取营养物质。当自噬开始时,可溶性的LC3-Ⅰ会偶联磷脂酰乙醇胺,转变为结合脂质的LC3-Ⅱ。所以LC3B-Ⅱ/Ⅰ大小可作为自噬标志物[21]且与自噬为正相关关系。由图1-c可知,LC3B-Ⅱ/Ⅰ整体呈下降趋势,证明Gln浓度的增加抑制了自噬。ULK1-555在营养限制的情况下,被腺苷酸活化蛋白激酶(AMPK)磷酸化和激活,会激活自噬。P62作为自噬特异性底物,在细胞自噬时,P62与细胞内泛素化的蛋白质结合后再与LC3-Ⅱ蛋白结合形成复合物,之后在自噬溶酶体中随降解底物一同被降解[22]。因此,P62蛋白表达量随着自噬程度的加强而降低。Gln浓度处理中,LC3B、ULK1-555和P62的拟合趋势进一步说明了Gln浓度的增加会抑制自噬。

3.2 饥饿时间对小鼠肝脏细胞自噬的影响

自噬是细胞对外部环境刺激产生的一种自我保护机制,以保证细胞在受到应激性的死亡威胁时保护细胞的存活[23]。因此,在饥饿时间处理中,由于Gln饥饿会作为营养不足因素刺激细胞自噬的发生。饥饿时间处理中,mTOR及其通路蛋白4EBP1和p70S6K1的蛋白表达趋势一致,随着饥饿时间的增加均呈现上升的趋势,说明自噬程度随着饥饿时间的增加而被抑制。在饥饿期间,氨基酸水平通过GCN2途径得以维持[24]。一旦氨基酸饥饿诱导自噬,该途径通过激活eIF2α上调ATF4,ATF4调控维持细胞内氨基酸稳态。ATF4上调氨基酸的生物合成并控制氨基酸转运蛋白基因,可通过调节氨基酸摄取来控制自噬的强度,调控维持细胞内氨基酸稳态。细胞可以通过GCN2途径将利用外源氨基酸,与自噬过程相联系,应对细胞内营养物质的波动。在饥饿期间,细胞可以通过GCN2途径增强氨基酸的摄取和合成,而不必要的细胞内容物则通过自噬回收。Chen等[25]关于Gln饥饿时间对细胞自噬影响的研究揭示了GCN2途径将外源氨基酸的可用性与自噬相结合,Gln饥饿导致mTOR失活并激活自噬,同时Gln饥饿激活了GCN2途径,该途径通过上调氨基酸转运蛋白的表达量进而导致氨基酸摄取增加,通过升高了细胞内氨基酸水平又重新激活了mTOR并抑制了自噬,本试验中随着饥饿时间的递增,ATF4的蛋白表达量先增加后减少,与前人的研究结果[25]一致,说明Gln饥饿导致自噬发生之后,ATF4通过上调其蛋白表达来紧急响应转运外源氨基酸至细胞内进行细胞稳态的调控,但是Gln饥饿超过12 h后,GCN2途径蛋白表达量呈现下降趋势,说明Gln缺失时,GCN2途径对自噬的调控有一定的限度。P62蛋白与自噬程度则为负相关关系。饥饿时间处理中,LC3B、ULK1-555和P62的拟合趋势则说明了随着Gln饥饿时间的增加,细胞自噬程度降低。
本试验中,Gln浓度处理和饥饿时间处理中的LC3BⅡ/Ⅰ、mTOR通路蛋白以及P62等自噬标志性蛋白表达量均说明随着Gln浓度增加或者饥饿时间延长会抑制自噬,结合GCN2通路蛋白的试验结果说明了两者机制不同,饥饿时间处理中的ATF4和eIF2α蛋白表达量与Gln浓度处理中降低的趋势不同,呈现出先增加而后趋于平缓的趋势,印证了当细胞外营养物质缺乏时,细胞通过调控GCN2通路蛋白摄取外源氨基酸。

3.3 Gln对小鼠肝脏细胞内游离氨基酸含量的影响

除了EAA外,NEAA对细胞自噬也有不可忽视的作用。Tan等[2]研究表明,Gln通过转变为Glu和恢复细胞内NEAA含量重激活mTORC1。Lin等[26]研究报道,饥饿时细胞内氨基酸主要由蛋白质水解来维持,Gln可能是氨基酸饥饿时维持NEAA池的优先氮源。因此,在饥饿时间处理中,小鼠肝脏细胞内随Gln饥饿时间增加而含量降低的氨基酸有8种,除Arg为EAAs外,其他降低含量的氨基酸均为NEAA;在Gln浓度处理中,随着Gln浓度增加而增加的氨基酸均为NEAA,均说明Gln对维持NEAA的稳定性发挥重要作用,这也对添加Gln而抑制自噬做出了解释。本研究通过饥饿时间处理以及Gln浓度处理2个角度对细胞内游离氨基酸含量变化进行探究,发现Gln对NEAA含量的影响显著。Gln饥饿导致7种NEAA含量降低,Gln浓度增加导致6种NEAA含量增加,除Gly在饥饿时间处理中含量下降外,2种Gln处理导致变化的6种NEAA完全相同,分别为Asn、Gln、Gly、Asp、Glu、Ala、Pro。
本试验中,饥饿处理导致12种氨基酸含量增加,其中除了Tyr、Ser和Cys为NEAA外,其他均为EAA。在饥饿期间,氨基酸水平通过GCN2途径得以维持[27],蛋白表达量上调的ATF4调控了12种氨基酸在细胞内含量的上升。由于Gln可以合成Glu和Asn,在Gln饥饿的情况下,细胞内的Gln、Glu和Asn含量均降低。而且细胞内的Asn、Gln、Asp、Glu、Ala和Pro含量随着Gln饥饿时间的增加而显著降低,说明这几种氨基酸在细胞内的含量受Gln缺失的影响,值得注意的是,Glu、Ala和Asp的含量急剧下降,这些是参与直接转氨合成NEAA的主要氨基酸[28]。Gln饥饿期间,GCN2途径通过调节氨基酸摄取和mTOR再活化来调节自噬。在本研究中得出同样的结论,在Gln饥饿期间,随着饥饿时间的增加,GCN2通路蛋白表达量增加,促进摄取外源氨基酸。在本试验中,Gln饥饿期间,检测到12种氨基酸的摄取增加。本试验结果同Chen等[25]的研究结果一致,说明细胞已经进化出精细的调控机制来调节细胞内营养物水平,以应对外源营养物供应的波动。

4 结论

随着Gln浓度增加而增加的氨基酸均为NEAA,Gln浓度对维持NEAA的稳定性发挥重要作用,影响自噬相关蛋白的表达情况,其浓度增加抑制自噬。Gln饥饿处理导致9种EAA含量增加,因为GCN2途径调控细胞摄取外源氨基酸使mTOR再激活,总体来说自噬程度随饥饿时间延长而减弱。
[1]
MIZUSHIMA N, KLIONSKY D J. Protein turnover via autophagy:implications for metabolism[J]. Annual Review of Nutrition, 2007, 27:19-40.

DOI

[2]
TAN H W S, SIM A Y L, LONG Y C. Glutamine metabolism regulates autophagy-dependent mTORC1 reactivation during amino acid starvation[J]. Nature Communications, 2017, 8(1):338.

DOI PMID

[3]
KUMA A, HATANO M, MATSUI M, et al. The role of autophagy during the early neonatal starvation period[J]. Nature, 2004, 432(7020):1032-1036.

DOI

[4]
SAKIYAMA T, MUSCH M W, ROPELESKI M J, et al. Glutamine increases autophagy under basal and stressed conditions in intestinal epithelial cells[J]. Gastroenterology, 2009, 136(3):924-932.

DOI PMID

[5]
XIAO J X, ALUGONGO G M, LI J H, et al. Review:how forage feeding early in life influences the growth rate,ruminal environment,and the establishment of feeding behavior in pre-weaned calves[J]. Animals, 2020, 10(2):188.

DOI

[6]
DING D J, MOU D L, ZHAO L P, et al. Maternal organic selenium supplementation alleviates LPS induced inflammation,autophagy and ER stress in the thymus and spleen of offspring piglets by improving the expression of selenoproteins[J]. Food & Function, 2021, 12(22):11214-11228.

[7]
WANG H Y, LI C C, PENG M, et al. N-acetylcysteine improves intestinal function and attenuates intestinal autophagy in piglets challenged with β-conglycinin[J]. Scientific Reports, 2021, 11(1):1261.

DOI PMID

[8]
GENG N, LIU K P, LU J W, et al. Autophagy of bovine mammary epithelial cell induced by intracellular Staphylococcus aureus[J]. Journal of Microbiology, 2020, 58(4):320-329.

DOI

[9]
HU Z Y, SU H W, LI S L, et al. Effect of parenteral administration of glutamine on autophagy of liver cell and immune responses in weaned calves[J]. Journal of Animal Physiology and Animal Nutrition, 2013, 97(6):1007-1014.

DOI PMID

[10]
XUE H T, CAO H B, XING C H, et al. Selenium triggers Nrf2-AMPK crosstalk to alleviate cadmium-induced autophagy in rabbit cerebrum[J]. Toxicology, 2021, 459:152855.

DOI

[11]
HASSANPOUR M, CHERAGHI O, RAHBARGHAZI R, et al. Autophagy stimulation delayed biological aging and decreased cardiac differentiation in rabbit mesenchymal stem cells[J]. Journal of Cardiovascular and Thoracic Research, 2021, 13(3):234-240.

DOI PMID

[12]
DI T Q, JIN J, HU X, et al. Curcumin improves the renal autophagy in rat experimental membranous nephropathy via regulating the PI3K/AKT/mTOR and Nrf2/HO-1 signaling pathways[J]. BioMed Research International, 2020,7069052.

[13]
THOMAS J D, ZHANG Y J, WEI Y H, et al. Rab1A is an mTORC1 activator and a colorectal oncogene[J]. Cancer Cell, 2014, 26(5):754-769.

DOI PMID

[14]
CHANTRANUPONG L, SCARIA S M, SAXTON R A, et al. The CASTOR proteins are arginine sensors for the mTORC1 pathway[J]. Cell, 2016, 165(1):153-164.

DOI PMID

[15]
COQUEIRO A Y, ROGERO M M, TIRAPEGUI J. Glutamine as an anti-fatigue amino acid in sports nutrition[J]. Nutrients, 2019, 11(4):863.

DOI

[16]
L’HUILLIER C, JARBEAU M, PINGEON F, et al. Influence of glutamine and branched-chain amino acids supplementation during refeeding in activity-based anorectic mice[J]. Nutrients, 2020, 12(11):3510.

DOI

[17]
VERMA V K, MALIK S, MUTNEJA E, et al. Mechanism involved in fortification by berberine in CDDP-induced nephrotoxicity[J]. Current Molecular Pharmacology, 2020, 13(4):342-352.

DOI

[18]
MAGNUSON B, EKIM B, FINGAR D C. Regulation and function of ribosomal protein S6 kinase (S6K) within mTOR signalling networks[J]. Biochemical Journal, 2012, 441(1):1-21.

DOI PMID

[19]
SANCHEZ-GARRIDO J, SHENOY A R. Regulation and repurposing of nutrient sensing and autophagy in innate immunity[J]. Autophagy, 2021, 17(7):1571-1591.

DOI

[20]
YE J B, KUMANOVA M, HART L S, et al. The GCN2-ATF4 pathway is critical for tumour cell survival and proliferation in response to nutrient deprivation[J]. EMBO Journal, 2010, 29(12):2082-2096.

DOI PMID

[21]
KONG W C, ZHU H Z, ZHENG S X, et al. Larotrectinib induces autophagic cell death through AMPK/mTOR signalling in colon cancer[J]. Journal of Cellular and Molecular Medicine, 2022, 26(21):5539-5550.

DOI

[22]
SEMENZA G L, NEJFELT M K, CHI S M, et al. Hypoxia-inducible nuclear factors bind to an enhancer element located 3’ to the human erythropoietin gene[J]. Proceedings of the National Academy of Sciences, 1991, 88(13):5680-5684.

DOI

[23]
PARK H S, SONG J W, PARK J H, et al. TXNIP/VDUP1 attenuates steatohepatitis via autophagy and fatty acid oxidation[J]. Autophagy, 2021, 17(9):2549-2564.

DOI

[24]
ZHANG N, YANG X, YUAN F J, et al. Increased amino acid uptake supports autophagy-deficient cell survival upon glutamine deprivation[J]. Cell Reports, 2018, 23(10):3006-3020.

DOI PMID

[25]
CHEN R, ZOU Y L, MAO D X, et al. The general amino acid control pathway regulates mTOR and autophagy during serum/glutamine starvation[J]. Journal of Cell Biology, 2014, 206(2):173-182.

DOI PMID

[26]
LIN T C, CHEN Y R, KENSICKI E, et al. Autophagy:resetting glutamine-dependent metabolism and oxygen consumption[J]. Autophagy, 2012, 8(10):1477-1493.

DOI

[27]
HINNEBUSCH A G. Translational regulation of GCN4 and the general amino acid control of yeast[J]. Annual Review of Microbiology, 2005, 59:407-450.

PMID

[28]
WISE D R, THOMPSON C B. Glutamine addiction:a new therapeutic target in cancer[J]. Trends in Biochemical Sciences, 2010, 35(8):427-433.

DOI

文章导航

/