综述

异黄酮及其代谢衍生物在畜禽生产中的应用

  • 洪常铭 , 1, 2 ,
  • 高开国 1 ,
  • 王丽 1 ,
  • 肖昊 , 1, *
展开
  • 1 广东省农业科学院动物科学研究所,畜禽育种国家重点实验室,农业部华南动物营养与饲料重点实验室,广东省动物育种与营养公共实验室,广东省畜禽育种与营养研究重点实验室,广州 510640
  • 2 华南农业大学动物科学学院,广东省动物营养与调控重点实验室,广州 510640
*肖 昊,副研究员,硕士生导师,E-mail:

洪常铭(1998—),男,广东广州人,硕士研究生,从事动物营养与免疫研究。E-mail:

收稿日期: 2022-11-18

  网络出版日期: 2023-06-08

基金资助

国家自然科学基金(31902172)

科技创新战略专项资金(高水平农科院建设)-青年研究员(R2022PY-QY007)

Application of Isoflavones and Theirs Metabolic Derivatives in Livestock and Poultry Production

  • HONG Changming , 1, 2 ,
  • GAO Kaiguo 1 ,
  • WANG Li 1 ,
  • XIAO Hao , 1, *
Expand
  • 1 Guangdong Key Laboratory of Animal and Poultry Breeding and Nutrition Research, Guangdong Public Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed in South China, Ministry of Agriculture, State Key Laboratory of Animal and Poultry Breeding, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 Guangdong Key Laboratory of Animal Nutrition and Regulation, College of Animal Science, South China Agricultural University, Guangzhou 510640, China
*associate professor, E-mail:

Received date: 2022-11-18

  Online published: 2023-06-08

摘要

异黄酮是以3-苯并吡喃酮为母核的黄酮类化合物群,结构与雌激素类似。异黄酮可以通过提高动物机体抗氧化能力、缓解机体炎症和发挥类雌激素作用等调节机体的生理功能。异黄酮代谢衍生物对于动物具有更高的生物利用度和活性。本文总结了异黄酮在动物体内的代谢途径、异黄酮及其代谢衍生物的生物学功能以及在畜牧生产中的研究和应用进展,旨在进一步促进异黄酮及其代谢衍生物在畜禽生产中的应用。

本文引用格式

洪常铭 , 高开国 , 王丽 , 肖昊 . 异黄酮及其代谢衍生物在畜禽生产中的应用[J]. 动物营养学报, 2023 , 35(6) : 3445 -3455 . DOI: 10.12418/CJAN2023.320

Abstract

Isoflavones are a class of polyphenol compounds with 3-benzopyrone as the parent nucleus and structurally similar to estrogen. Isoflavones can regulate the physiological functions of animal by improving the antioxidant capacity, alleviating the inflammation and playing the role of estrogen. Moreover, isoflavone metabolic derivatives have higher bioavailability and activity in animals. This paper reviewed the metabolic process of isoflavones, the biological functions and the research progress in livestock and poultry production of isoflavones and their metabolic derivatives, aiming to further promote the application of isoflavones and their metabolic derivatives in livestock and poultry production.

异黄酮(isoflavone,ISO)是一种存在于大豆、蚕豆和扁豆等豆科植物中的黄酮类化合物。由于异黄酮主要来自于植物,化学结构与雌激素相类似,因此异黄酮又被称为是天然的植物类雌激素。异黄酮具有不同的官能团,包括酚羟基、芳香环和双键,这使得异黄酮能够改性成为各种具有更高生物活性的衍生物。研究表明,异黄酮具有抗氧化、抗炎症、提高机体免疫、预防心血管疾病、防治骨质疏松症和预防激素相关的癌症(如乳腺癌和前列腺癌)等功效[1-6]。近年来,异黄酮受到畜牧行业的广泛关注。因此,本文综述了异黄酮及其代谢衍生物的种类以及在动物体内的代谢过程、异黄酮及其代谢衍生物的生物学功能以及在畜禽生产中的应用进展,旨在进一步促进异黄酮及其代谢衍生物在畜禽生产中的应用研究。

1 异黄酮在动物体内的代谢

异黄酮的化学结构与雌激素类似,能预防和治疗激素相关疾病。因此,异黄酮在疾病预防中的作用不可忽视,对异黄酮在动物体内的代谢途径及其过程的研究是必不可少的。异黄酮是以3-苯并吡喃酮为母核的化合物群,主要有大豆苷(daidzin)、染料木苷(genistin)和黄豆黄苷(glycitin)这3种以β-葡萄糖苷的形式存在的化合物。异黄酮被机体吸收后,在机体内会被代谢形成共轭硫酸盐、葡萄糖醛酸苷和二氢衍生物等,其生物利用度和雌激素特性也会改变[7]。由于肠道不仅能够消化吸收营养物质,还能防止有害化合物进入体内,因此异黄酮会被肠道识别为异原物质,必须经过内源酶或微生物群的水解才能被吸收[8]

1.1 异黄酮在组织器官中的代谢

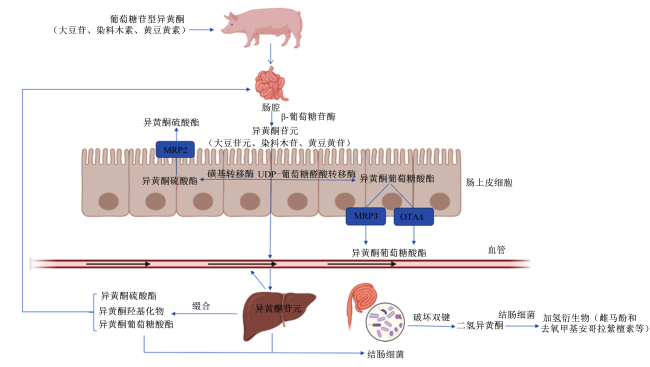
异黄酮进入小肠后,在肠腔内β-葡萄糖苷酶的作用下被β-葡萄糖苷水解为苷元形成异黄酮苷元,然后进入小肠细胞,在小肠细胞内异黄酮苷元通过磺基转移酶(sulfotransferases,SULT)和UDP-葡萄糖醛酸转移酶(UDP-glucuronosyltransferases,UGT)对其分别进行硫酸化和葡萄糖醛酸化,被硫酸化缀合的异黄酮主要通过顶膜上多药耐药相关蛋白2(multidrug resistance-associated protein 2,MRP2)转运出细胞,而被葡萄糖醛酸化缀合的异黄酮主要通过基底外侧膜上的多药耐药相关蛋白3(multidrug resistance-associated protein 3,MRP3)和有机阴离子转运蛋白4(organic anion transporter 4,OAT4)转运出细胞[9]。少量未被缀合的异黄酮随异黄酮缀合产物一同转运出细胞扩散进入血液,然后随血液进入肝脏。在肝脏中,异黄酮继续被SULT、UGT和细胞色素P450 (cytochrome P450,CYP450)缀合分别形成异黄酮硫酸化、葡萄糖醛酸化和羟基化缀合产物,然后随血液和胆汁进入肠腔中被重新吸收利用进行二次水解,并再次到肝脏代谢[7,10]。异黄酮及其代谢产物从肝脏中经过体循环到全身各个组织器官中进行利用,最终由肾脏参与异黄酮及其代谢产物的排出[7,11]

1.2 异黄酮在肠道微生物中的代谢

一部分异黄酮及其代谢产物离开小肠进入到结肠,在结肠中通过肠道菌群进一步代谢。异黄酮在结肠细菌的作用下通过破坏异黄酮的2个酚环之间的双键将其代谢为二氢异黄酮[12]。二氢异黄酮在结肠细菌的作用下继续被氢化代谢为雌马酚(equol)和氧去甲基安哥拉紫檀素(O-desmethylangolensin,O-DMA)等具有更高生物活性的异黄酮代谢衍生物[7,10,12]。此外,在人尿中的3’’-羟基-氧去甲基安哥拉紫檀素、3’,4’,7-三羟基-二氢异黄酮、4’,7,8-三羟基-二氢异黄酮和4’,6,7-三羟基-二氢异黄酮也被确定为异黄酮代谢产物[13]。由结肠微生物代谢形成的和尿液中的异黄酮代谢产物最终都随着粪便和尿液排出体外。异黄酮在组织器官和肠道微生物中的代谢过程如图1所示。
图1 异黄酮的代谢途径

MRP2:多药耐药相关蛋白2 multidrug resistance-associated protein 2;MRP3:多药耐药相关蛋白3 multidrug resistance-associated protein 3;OAT4:有机阴离子转运蛋白4 organic anion transporter 4。

Fig.1 Metabolic pathways of isoflavones

1.3 异黄酮代谢衍生物

异黄酮具有芳香环、酚羟基和双键等不同的官能团,这些官能团使得异黄酮存在多种代谢衍生物,异黄酮及其代谢衍生物的种类见表1。自然界中存在的异黄酮一般都以β-葡萄糖苷的形式存在,如大豆苷、染料木苷和黄豆黄苷。经过β-葡萄糖苷酶水解后会形成大豆苷元(daidzein)、染料木素(genistein)和黄豆黄素(glycitein)这3种异黄酮苷元。此外,在体内异黄酮也能在各种酶的作用下形成其他类型的衍生物,如羟化衍生物(2’-羟基大豆苷元、2’-染料木苷、邻羟基大豆苷元和邻羟基染料木素等)、加氢衍生物(二氢大豆苷元、二氢染料木素、雌马酚和O-DMA等)、硫酸化和葡萄糖醛酸化衍生物等[9-10,14-15]。其中,雌马酚是异黄酮最具有代表性的一种细菌代谢产物,其结构和生理功能与异黄酮相类似,且雌马酚相对于异黄酮具有更高的生物活性和保健效益,因此雌马酚受到广泛的研究[16]。近年来研究人员通过试验发现了一系列异黄酮衍生物,包括甲氧基衍生物(3’-甲氧基大豆苷元、4’’-甲氧基染料木苷和4’’-甲氧基黄豆黄苷等)、乙酰基衍生物(6’’-O-乙酰大豆苷和6’’-O-乙酰染料木苷等)和丙二酰基衍生物(6’’-O-丙二酰大豆苷和6’’-O-丙二酰染料木苷等)[17-25]
表1 异黄酮及其代谢衍生物的种类

Table 1 Categories of isoflavones and their metabolic derivatives

种类
Categories
存在形式
Existence forms
代谢衍生物名称
Names of metabolic derivatives
参考文献
References
游离型 大豆苷元
葡萄糖苷型 大豆苷
[19-20]
乙酰基葡萄糖苷型 6’’-O-乙酰大豆苷
丙二酰基葡萄糖苷型 6’’-O-丙二酰大豆苷
大豆苷Daidzin 硫酸酯衍生物 大豆苷元-4’-硫酸、大豆苷元-7-硫酸

[9-10,15]
葡萄糖醛酸酯衍生物 大豆苷元-4’-葡萄糖醛酸、
大豆苷元-7-葡萄糖醛酸
加氢衍生物 二氢大豆苷元、去甲氧基安哥拉紫檀素、雌马酚 [14,16,22]
羟化衍生物 2’-羟基大豆苷元、6-羟基大豆苷元、邻羟基大豆苷元 [10,24]
甲氧基衍生物 3’-甲氧基大豆苷元、4”-甲氧基大豆苷元 [18,21]
游离型 染料木素
葡萄糖苷型 染料木苷
[19-20]
乙酰基葡萄糖苷型 6’’-O-乙酰染料木苷
丙二酰基葡萄糖苷型 6’’-O-丙二酰染料木苷
染料木苷 Genistin 硫酸酯衍生物 染料木苷-4’-硫酸、染料木苷-7-硫酸

[9-10,15]
葡萄糖醛酸酯衍生物 染料木苷-4’-葡萄糖醛酸、
染料木苷-7-葡萄糖醛酸
加氢衍生物 二氢染料木苷、5-羟基-雌马酚、
6’-羟基-O-去甲基安哥拉紫檀素
[22,25]
羟化衍生物 2’-羟基染料木苷、邻羟基染料木苷 [10]
甲氧基衍生物 4’’-甲氧基染料木苷 [18]
游离型 黄豆黄素
葡萄糖苷型 黄豆黄苷
[19-20]
乙酰基葡萄糖苷型 6’’-O-乙酰黄豆黄苷
丙二酰基葡萄糖苷型 6’’-O-丙二酰黄豆黄苷
黄豆黄素苷 Glycitein 硫酸酯衍生物 黄豆黄苷-4’-硫酸、黄豆黄苷-7-硫酸

[9,15]
葡萄糖醛酸酯衍生物 黄豆黄苷-4’-葡萄糖醛酸、
黄豆黄苷-7-葡萄糖醛酸
加氢衍生物 二氢黄豆黄苷 [23]
羟化衍生物 8-羟基黄豆黄苷 [24]
甲氧基衍生物 4’’-甲氧基黄豆黄苷 [18]

1.4 异黄酮在不同物种间的代谢差异

不同物种间异黄酮的代谢不尽相同。通过给雌性大鼠、猪、猴子饲喂含有大豆蛋白分离物的饲料,同时人女性志愿者也食用含有大豆蛋白分离物的食物,研究发现,大鼠和猴子血清中的雌马酚含量分别占异黄酮及其代谢物总量的77%和52%,而猪的血清和人的血浆中检测不到雌马酚,但能检测大量的大豆苷和染料木苷;此外,在猴子和大鼠的尿液中检测出含有大量的异黄酮苷元,而猪和人尿液中大量异黄酮都是以葡萄糖醛酸的形式存在,也含有少部分(<10%)的异黄酮苷元;人血浆中的异黄酮主要以葡萄糖醛酸酯(75%)的形式存在,其次是硫酸盐(24%),并且含有少量葡萄糖苷元(1%),而猴子血清中64%的异黄酮以硫酸盐的形式存在,30%为葡萄糖醛酸酯,6%为葡萄糖苷元[26]。有研究表明,在人体内代谢的异黄酮约有20%是以苷元的形式存在,且以葡萄糖醛酸酯的形式为主[27]。造成这些差异的可能因素有:不同物种间的体型差异、肠道菌群和体内消化酶活性差异等,这仍需要进一步的研究。

2 异黄酮及其代谢衍生物的生物学功能

2.1 抗氧化功能

异黄酮及其代谢衍生物存在多个酚羟基,可为自由基提供氢离子,通过与金属离子螯合来增强其与自由基的结合能力,从而清除自由基,因此异黄酮具有良好的抗氧化能力。研究表明,异黄酮的抗氧化能力与其酚羟基的数量和位置有关[28-29]。此外,异黄酮可以作为氢或电子的供体,清除自由基;除了直接与自由基结合来清除自由基从而达到抗氧化的作用,异黄酮也可以通过增强各种抗氧化酶的活性间接缓解机体的氧化应激状态[30]。熊昕宜等[31]使用异黄酮对肥胖模型大鼠进行灌喂,发现大豆异黄酮能有效提高大鼠肝脏超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)和过氧化氢酶(CAT)的活性,改善了肥胖模型大鼠肝脏氧化应激,从而逆转肥胖模型大鼠的肝损伤。饲喂含0.2%异黄酮的饲粮降低了4周龄大鼠血清中脂质过氧化物含量[32]。此外,也有研究表明,异黄酮可通过进入到生物膜来限制膜的流动性,从而限制自由基的扩散,减少自由基在机体中的反应[33]。总的来说,由于异黄酮及其代谢衍生物有着其独特化学结构,其能直接或者间接影响机体内自由基的反应,清除机体内多余的自由基,从而达到抗氧化的作用。

2.2 抗炎症功能

异黄酮属于多酚类化合物,其具有一定的抗炎作用,其抗炎作用的主要机制有如下:1)抗氧化,通过清除自由基和抑制脂质过氧化从而达到抗炎的作用;2)调节免疫功能,其活性成分通过调节炎症相关信号通路[如Toll样受体(TLR)/核因子-κB(NF-κB)通路]和相关蛋白和酶的表达,从而促进炎症细胞因子如肿瘤坏死因子-α(tumor necrosis factor-α, TNF-α)和白细胞介素(IL)家族IL-6、IL-8的表达和释放,并抑制抗炎细胞因子(如IL-10)的表达和释放;3)调节肠道菌群,通过调节肠道菌群平衡,防止外来微生物的黏附和病原体的入侵,从而保护肠道黏膜屏障,减轻肠道炎症,调节机体黏膜免疫[34]。此外,在脂多糖(LPS)刺激引起全身炎症的小鼠模型中,异黄酮能够有效地降低小鼠血液中白细胞的数量,减少小鼠腹腔渗出液及其细胞上清液中IL-1β、IL-6、一氧化氮(NO)和前列腺素E2(prostaglandin E2,PGE2)的产生,从而缓解炎症[35]。同样,在高脂饲粮喂养诱导的肥胖症小鼠模型中,异黄酮能够通过下调其肝脏TNF-αIL-1βIL-6的表达来缓解肝脏炎症,且逆转肥胖导致的肝组织病理损伤[31]

2.3 类雌激素功能

由于异黄酮的化学结构与17-β雌二醇(17-β-estradiol)类似,因此异黄酮也发挥着弱雌激素的作用。雌激素受体(estrogen receptor,ER)α和ERβ在机体内起到双向调控的作用,且ERα和ERβ与各种激素类疾病如乳腺癌、骨质疏松症、心血管疾病、肥胖及其他代谢性疾病等有关[36]。在去势雌兔模型中,异黄酮通过下调ERα的水平,从而减轻球囊导管诱导的颈动脉内膜和中层增生,起到保护心血管预防心血管疾病的作用[37]。Weigt等[38]在雌性肥胖症Wistar大鼠模型中发现,添加染料木素处理10周后显著减少大鼠肝脏和骨骼肌中的脂肪生成和甘油三酯的积累,这与选择性激活ERα和ERβ一致,表明染料木素可能通过激活ERα和ERβ来减少肝脏中的脂肪积累,提高胰岛素的敏感性,从而改善机体对脂质和葡萄糖的代谢和利用。此外,异黄酮能够通过增加骨密度以及提高成骨细胞雌激素受体ERα的表达来促进成骨细胞的增殖,从而能够防治骨质疏松症[39]。在骨代谢过程中,染料木素还可以通过调控NF-κB信号通路和骨形成蛋白2(bone morphogenetic protein 2,BMP2)的表达来促进成骨细胞的增殖和分化[40-41]。Kim等[42]利用去卵巢的骨质疏松大鼠模型研究发现,适当添加异黄酮能够代替雌激素的作用来减缓切除卵巢后所引起的骨质疏松症。Cepeda等[43]研究发现,在体外祖细胞和成骨细胞共培养模型中添加染料木素能够通过激活ER和一氧化氮合成酶(nitric oxide synthase,NOS),进而激活胞外调节蛋白激酶(extracellular regulated protein kinases,ERKs)和磷脂酰肌醇3-激酶(phosphatidylin-ositol-3-kinase,PI3K)信号通路,促进祖细胞向成骨细胞的分化。Wu等[44]研究发现,在大鼠成骨细胞和人骨肉瘤细胞(U-2 OS)模型中添加染料木素后通过激活ERα来促进线粒体ATP合成相关基因[如细胞色素氧化酶(COX)Ⅰ和COXⅡ]的表达,进而促进成骨细胞的活化。此外,异黄酮的弱雌激素作用能够发挥预防乳腺癌和前列腺癌的作用[45]。一项大规模的调查表明,绝经妇女服用异黄酮相对于服用安慰剂更能减少血管舒缩症状的频率[46]。此外,妇女绝经前后服用适量异黄酮均能在一定程度上发挥雌激素的作用[47-48]。在机体内雌激素水平较低的情况下异黄酮可以作为受体激动剂与ERα结合发挥雌激素作用,而在机体内雌激素水平较高的情况下异黄酮则会与17-β雌二醇竞争与ERα和ERβ结合发挥雌激素功能拮抗作用,在低浓度的异黄酮(<10 μmol/L)条件下乳腺癌细胞会受到刺激生长,而在高浓度的异黄酮(>10 μmol/L)条件下乳腺癌细胞的生长则会受到抑制[5,49]。在卵巢切除大鼠的模型中,异黄酮的摄取显著提高ERβ的表达,且抑制大鼠乳腺中肿瘤的生长[50]。此外,异黄酮也有可能是通过抑制与酪氨酸激酶受体(tyrosine kinase receptors)相关的信号通路来抑制乳腺癌细胞的增殖[5]。然而,异黄酮及其代谢衍生物的类雌激素作用和抗雌激素作用的具体机制仍需进一步的研究。

3 异黄酮及其代谢衍生物在畜禽生产中的应用

3.1 提高生长性能

异黄酮及其代谢衍生物能够通过提高饲料转化率来促进畜禽的生长发育,提高畜禽的生长性能。在饲粮中添加40和80 mg/kg异黄酮能显著提高断奶仔猪各阶段的平均日采食量,降低料重比[51]。饲粮中添加维生素E(200 mg/kg)、富硒酵母(0.3 mg/kg)和异黄酮(20 mg/kg)的复合抗氧化剂能降低第14~28天育肥猪的平均日采食量和料重比,降低血浆总蛋白、尿素氮、甘油三酯含量,从而提高了饲料转化率,并且也通过调节肠道菌群来改善育肥猪的背膘厚度和肉品质[52]。在断奶仔猪饲粮中添加50 mg/kg大豆苷元能够显著提高第1~72天的平均日增重和第72天的体重[53]。此外,在LPS诱导断奶仔猪模型的饲粮中添加40 mg/kg异黄酮能增加其平均日增重和平均日采食量[54]
异黄酮及其代谢衍生物也可以作为饲料添加剂来提高家禽的生长性能。在饲粮中添加10~80 mg/kg异黄酮能够提高肉鸡的平均日采食量和体重,降低料重比,同时能够提高其胸大肌的系水力和pH,并且降低乳酸的产生[55]。给被饲喂过含3%氧化鱼油的无豆粕饲粮肉公鸡再饲喂含20 mg/kg异黄酮的饲粮后,能够显著提高其胸大肌的颜色深度和系水力[56]。Wang等[57]研究发现,在饲粮中单独添加23 mg/kg异黄酮或与其他饲料添加剂(0.1%甜菜碱和嘌呤核苷酸)联用均能显著降低第1~42天雄性肉鸡的料重比和腹部脂肪含量,并且能提高肌肉中肌苷酸含量。此外,异黄酮(400和800 mg/kg)和25-羟胆钙化醇(250和500 IU/kg)联用或者在产蛋后期的日本鹌鹑单独饲喂含400和800 mg/kg异黄酮的饲粮均能够显著提高正常温度(22 ℃)和热应激环境(34 ℃)下饲养鹌鹑的骨矿化水平,同时显著增加热应激环境下饲养的产蛋后期鹌鹑的采食量和体重,提高其饲料转化率及胴体性状[58-59]。在热应激环境下饲养的日本鹌鹑饲粮中添加染料木素(200、400和800 mg/kg)显著提高了其采食量和饲料转化率,进而提高了鹌鹑的体重,改善了胴体性状[60]。总的来说,在饲粮中添加异黄酮能够通过调控畜禽的采食和其体内各种物质的含量和活性,从而提高畜禽的饲料转化率,进而提高畜禽的生长性能。

3.2 提高繁殖性能

由于妊娠后期和泌乳期母猪极易受到营养、管理、高温,以及其自身机体代谢旺盛等应激因素的影响,从而使其繁殖性能下降。因此,采取正确的营养调控措施来提高其繁殖性能是很有必要的[61-62]。异黄酮是一种天然的植物类雌激素,具有一定的雌激素活性,因此异黄酮能通过调节母猪体内雌激素的分泌来改善母猪的繁殖性能。有研究表明,在妊娠后期(第85天开始)和哺乳期母猪饲粮中添加大豆苷元(15、30和45 mg/kg)提高了母猪泌乳期第1天和第7天分泌的乳汁中乳蛋白含量,提高了泌乳期第7天和第14天分泌的乳汁中乳脂含量,同时提高了其哺乳仔猪的平均日增重和断奶时的体重,且与饲粮中大豆苷元的含量呈线性正相关[63]。给妊娠期母猪饲喂含200 mg/kg大豆苷元的饲粮能够通过提高母猪血清中雌激素和孕酮含量,提高母猪胎盘的抗氧化能力并上调胎盘中的关键功能基因例如溶质载体家族38成员1(SLC38A1)和胰岛素样生长因子-1(IGF-1)来提高其窝产仔数和窝活仔数,并且还能够有效减少母猪的分娩时间,提高母猪的生产效率[64]
家禽在产蛋期的营养水平对其产蛋性能的影响至关重要,异黄酮能通过调节家禽体内激素的水平来改善其繁殖性能。Setchell等[65]研究发现,在18月龄的藏香鸡饲粮中添加225 mg/kg异黄酮苷元对其进行28 d的饲喂后,能够显著提高其产蛋率和总产蛋数,并且使其蛋黄中胆固醇含量降低了30%。Sahin等[59]研究发现,在饲粮中添加400和800 mg/kg异黄酮显著提高了热应激环境(34 ℃)下日本鹌鹑的产蛋量、蛋重、蛋壳重和蛋壳厚度。此外,Xiao等[66]利用1 nmol/L染料木素处理鸡颗粒细胞48 h后,能够显著提高其ERβ、类固醇激素合成急性调节蛋白(steroidogenic acute regulatory protein,StAR)、细胞色素P450侧链裂解酶(P450 side-chain cleavage enzyme,P450scc)和3β-羟基类固醇脱氢酶(3β-hydroxysteroid dehydrogenase enzyme,3β-HSD)的基因表达水平,表明染料木素通过与ERβ结合,使关键酶的基因表达上调来增加孕酮的产生,这对蛋鸡产蛋后期的产蛋性能有积极的影响作用。以上结果表明,在母猪妊娠后期与泌乳期和家禽产蛋后期的饲粮中添加适量异黄酮或其代谢衍生物能够有效提高母猪的繁殖性能和家禽的产蛋性能。

3.3 提高抗氧化能力

大量研究表明,异黄酮及其代谢衍生物能够通过清除体内自由基达到缓解氧化应激的作用。给断奶仔猪饲喂含有10~80 mg/kg异黄酮的饲粮显著提高其肝脏中GSH-Px活性以及血清和空肠中总超氧化物歧化酶(T-SOD)活性,同时降低肝脏中丙二醛(MDA)含量[51]。此外,本实验室在母猪妊娠后期和泌乳期饲粮中添加40 mg/kg异黄酮-S(纯度为99%的异黄酮)显著提高其初乳总抗氧化能力(T-AOC)及T-SOD、CAT、GSH-Px活性,并提高仔猪血清中CAT活性[67]。给泌乳期母猪饲喂含有大豆苷元的饲粮能够显著提高其血浆T-AOC、T-SOD、CAT和GSH-Px活性,显著降低血浆MDA含量,同时显著提高初乳中T-SOD和GSH-Px活性并降低MDA含量[63]。本实验室研究发现,在育肥猪饲粮中添加维生素E(200 mg/kg)、富硒酵母(0.3 mg/kg)和异黄酮(20 mg/kg)的复合抗氧化剂可显著提高血浆谷胱甘肽(GSH)与谷胱甘肽氧化(GSSG)比值,并且降低血浆MDA含量[52]。此外,在哺乳母猪饲粮中添加200 mg/kg异黄酮和黄芪多糖混合物(1∶5)可显著提高其血清SOD活性[68]
此外,异黄酮对于缓解家禽的氧化应激也有一定的作用。给42日龄的肉公鸡饲喂含异黄酮(10~80 mg/kg)的饲粮可显著降低血浆和胸大肌中MDA含量,提高血浆T-AOC和T-SOD活性,并且提高胸大肌中CAT和T-SOD活性[55]。Onderci等[60]在饲粮中添加染料木素(200、400和800 mg/kg)对日本鹌鹑进行饲喂,发现能够显著降低其血清和肝脏MDA含量。总的来说,在畜禽饲粮中添加一定量的异黄酮能够有效提高畜禽自身的抗氧化能力,从而缓解其饲养环境所引起的氧化应激。

3.4 增强免疫功能

新生仔猪和断奶仔猪极易受到细菌及其细胞壁成分(如LPS)和病毒的感染,从而会对其肠道造成损伤,使其绒毛变短、抗氧化系统和肠道屏障受损、免疫能力下降,使仔猪发生腹泻,影响仔猪生长发育。异黄酮被证实具有缓解仔猪肠道损伤的功能。LPS攻击仔猪后会使其空肠黏膜中β-防御素-2(β-defensin-2,pBD-2)、黏蛋白-4(mucin-4,MUC-4)、紧密连接蛋白-1(zonula occludens-1,ZO-1)和咬合蛋白(occludin)含量降低,给其饲喂异黄酮能够缓解LPS攻击仔猪带来的肠道损伤,提高其空肠黏膜ZO-1和咬合蛋白含量;饲喂异黄酮还能够抑制LPS刺激所造成的仔猪空肠黏膜中p38的磷酸化以及TLR4通路的激活,有利于肠道炎症的缓解[54]。此外,异黄酮(20 mg/kg)和氧化鱼油(50 g/kg)联用能够通过提高初生仔猪空肠绒毛高度、空肠黏膜中分泌型免疫球蛋白A(secretory immunoglobulin A,SIgA)和IL-4含量和降低空肠黏膜IL-1β和IL-2含量来改善仔猪肠道形态、抗氧化能力和免疫功能,在一定程度上给初生仔猪缓解单独饲喂氧化鱼油所带来的负面影响[69]。此外,Greiner等[70]发现在基础饲粮中添加200~400 mg/kg的染料木素能够增强猪繁殖与呼吸综合征病毒(porcine reproductive and respiratory syndrome virus,PRRSV)感染仔猪的全身性血清病毒清除功能。
病毒和细菌性疾病是造成家禽养殖业经济损失的一个重要的因素,对家禽养殖业造成了巨大的威胁。因此,通过营养调控来提高家禽免疫力,减少疾病的发生,从而提高家禽养殖业的生产效益是很有必要的[71]。在注射了LPS的1日龄雄性公鸡饲粮中添加5 mg/kg染料木素或不同剂量(5、10和20 mg/kg)的染料木素和橙皮苷混合物(1∶4)能够逆转LPS所带来的肠道绒毛长度的萎缩和隐窝深度的增加,并且通过提高吞噬细胞的吞噬活性来提高肠道免疫功能[72]。此外,Huang等[73]研究发现,在饲粮中添加40 mg/kg染料木素饲喂注射了LPS的1日龄雄性公鸡21 d后,能够逆转LPS所造成的鸡胸腺细胞凋亡和炎症反应,显著降低了外周血中CD3+ T淋巴细胞的百分比以及CD4+/CD8+ T淋巴细胞的比值。本实验室研究发现,在感染了法氏囊病病毒的黄羽肉鸡饲粮中添加10~40 mg/kg的异黄酮显著增加了肉鸡体内CD3+、CD4+和CD8+ T淋巴细胞的百分比,并且增加了血清免疫球蛋白(Ig)A、IgM和IgG含量以及法氏囊病病毒抗体的水平[74]。这表明在饲粮中添加一定量的异黄酮能够有效提高法氏囊病病毒感染黄羽肉鸡的细胞和体液免疫,增强对法氏囊病的抵抗力。总之,饲粮中添加异黄酮能够通过调节畜禽体内的免疫反应,从而提高机体对外来病原菌的抵抗能力,从而提高机体免疫力。

4 小结与展望

异黄酮作为植物类雌激素,除了能够通过发挥类雌激素作用改善母猪繁殖性能和生长性能外,还能够缓解初生仔猪和断奶仔猪应激、提高初生仔猪和断奶仔猪的免疫能力并改善其肠道及机体的健康状态等。并且异黄酮能够通过改善肉鸡的健康状态、缓解肉鸡应激来提高肉鸡的肉品质。由此可见,异黄酮在畜禽生产中发挥着很重要的作用。本文综述了异黄酮及其代谢衍生物的种类以及在动物机体内的代谢机制,异黄酮及其代谢衍生物的抗氧化应激、抗炎和类雌激素的生物学功能,并探讨了异黄酮及其代谢衍生物在畜禽生产中的研究进展。目前,异黄酮及其代谢衍生物在畜禽机体内的代谢过程以及对畜禽肠道屏障和肠道健康的影响虽然已经有所研究,但其研究内容尚浅,异黄酮及其代谢衍生物在畜禽生产中的应用还比较有限。因此,深入研究异黄酮及其代谢衍生物对畜禽生长性能和繁殖性能的作用机制、不同种类异黄酮代谢衍生物在不同畜禽种类和畜禽的不同生长时期中的适宜添加量是很有必要的,这将为促进畜牧生产的发展提供新的思路,对畜牧生产的经济增效具有重要意义。
[1]
XIE C L, PARK K H, KANG S S, et al. Isoflavone-enriched soybean leaves attenuate ovariectomy-induced osteoporosis in rats by anti-inflammatory activity[J]. Journal of the Science of Food and Agriculture, 2021, 101(4):1499-1506.

DOI

[2]
LI Y P, JIANG X R, WEI Z X, et al. Effects of soybean isoflavones on the growth performance,intestinal morphology and antioxidative properties in pigs[J]. Animal, 2020, 14(11):2262-2270.

DOI

[3]
RIMBACH G, BOESCH-SAADATMANDI C, FRANK J, et al. Dietary isoflavones in the prevention of cardiovascular disease—a molecular perspective[J]. Food and Chemical Toxicology, 2008, 46(4):1308-1319.

DOI

[4]
STEINER C, ARNOULD S, SCALBERT A, et al. Isoflavones and the prevention of breast and prostate cancer:new perspectives opened by nutrigenomics[J]. British Journal of Nutrition, 2008, 99(E Suppl.1):ES78-ES108.

DOI

[5]
PABICH M, MATERSKA M. Biological effect of soy isoflavones in the prevention of civilization diseases[J]. Nutrients, 2019, 11(7):1660.

DOI

[6]
DANCIU C, AVRAM S, PAVEL I Z, et al. Main isoflavones found in dietary sources as natural anti-inflammatory agents[J]. Current Drug Targets, 2018, 19(7):841-853.

DOI PMID

[7]
RAFII F. The role of colonic bacteria in the metabolism of the natural isoflavone daidzin to equol[J]. Metabolites, 2015, 5(1):56-73.

DOI PMID

[8]
FRANKE A A, LAI J F, HALM B M. Absorption,distribution,metabolism,and excretion of isoflavonoids after soy intake[J]. Archives of Biochemistry and Biophysics, 2014, 559:24-28.

DOI

[9]
CHEN J, LIN H M, HU M. Absorption and metabolism of genistein and its five isoflavone analogs in the human intestinal Caco-2 model[J]. Cancer Chemotherapy and Pharmacology, 2005, 55(2):159-169.

PMID

[10]
HSIAO Y H, HO C T, PAN M H. Bioavailability and health benefits of major isoflavone aglycones and their metabolites[J]. Journal of Functional Foods, 2020, 74:104164.

DOI

[11]
SETCHELL K D, BROWN N M, DESAI P, et al. Bioavailability of pure isoflavones in healthy humans and analysis of commercial soy isoflavone supplements[J]. The Journal of Nutrition, 2001, 131(Suppl.4):1362S-1375S.

DOI

[12]
GAYA P, MEDINA M, SÁNCHEZ-JIMÉNEZ A, et al. Phytoestrogen metabolism by adult human gut microbiota[J]. Molecules, 2016, 21(8):1034.

DOI

[13]
HEINONEN S M, WÄHÄLÄ K, LIUKKONEN K H, et al. Studies of the in vitro intestinal metabolism of isoflavones aid in the identification of their urinary metabolites[J]. Journal of Agricultural and Food Chemistry, 2004, 52(9):2640-2646.

DOI

[14]
KIM I S. Current perspectives on the beneficial effects of soybean isoflavones and their metabolites for humans[J]. Antioxidants, 2021, 10(7):1064.

DOI

[15]
HENDRICH S. Bioavailability of isoflavones[J]. Journal of Chromatography B:Analytical Technologies in the Biomedical and Life Sciences, 2002, 777(1/2):203-210.

DOI

[16]
MAYO B, VÁZQUEZ L, FLÓREZ A B. Equol:a bacterial metabolite from the daidzein isoflavone and its presumed beneficial health effects[J]. Nutrients, 2019, 11(9):2231.

DOI

[17]
CHU H N, LEE S J, WANG X H, et al. A correlation study on in vitro physiological activities of soybean cultivars,19 individual isoflavone derivatives,and genetic characteristics[J]. Antioxidants, 2021, 10(12):2027.

DOI

[18]
PARK D K, CHOI W S, PARK H J. Antiallergic activity of novel isoflavone methyl-glycosides from Cordyceps militaris grown on germinated soybeans in antigen-stimulated mast cells[J]. Journal of Agricultural and Food Chemistry, 2012, 60(9):2309-2315.

DOI

[19]
KIM M S, JUNG Y S, JANG D, et al. Antioxidant capacity of 12 major soybean isoflavones and their bioavailability under simulated digestion and in human intestinal Caco-2 cells[J]. Food Chemistry, 2022, 374:131493.

DOI

[20]
MURPHY P A, BARUA K, HAUCK C C. Solvent extraction selection in the determination of isoflavones in soy foods[J]. Journal of Chromatography B:Analytical Technologies in the Biomedical and Life Sciences, 2002, 777(1/2):129-138.

DOI

[21]
XU R J, FEI S H, CHEN L Y, et al. 3’-methoxydaidzein exerts analgesic activity by inhibiting voltage-gated sodium channels[J]. Chinese Journal of Natural Medicines, 2019, 17(6):413-423.

DOI

[22]
SÁNCHEZ-CALVO J M, RODRÍGUEZ-IGLESIAS M A, MOLINILLO J M G, et al. Soy isoflavones and their relationship with microflora:beneficial effects on human health in equol producers[J]. Phytochemistry Reviews, 2013, 12(4):979-1000.

DOI

[23]
SIMONS A L, RENOUF M, HENDRICH S, et al. Metabolism of glycitein (7,4’-dihydroxy-6-methoxy-isoflavone) by human gut microflora[J]. Journal of Agricultural and Food Chemistry, 2005, 53(22):8519-8525.

DOI

[24]
HIROTA A, INABA M, CHEN Y C, et al. Isolation of 8-hydroxyglycitein and 6-hydroxydaidzein from soybean miso[J]. Bioscience,Biotechnology,and Biochemistry, 2004, 68(6):1372-1374.

DOI

[25]
HOSNY M, ROSAZZA J P N. New isoflavone and triterpene glycosides from soybeans[J]. Journal of Natural Products, 2002, 65(6):805-813.

PMID

[26]
GU L W, HOUSE S E, PRIOR R L, et al. Metabolic phenotype of isoflavones differ among female rats,pigs,monkeys,and women[J]. The Journal of Nutrition, 2006, 136(5):1215-1221.

DOI

[27]
ZHANG Y, HENDRICH S, MURPHY P A. Glucuronides are the main isoflavone metabolites in women[J]. The Journal of Nutrition, 2003, 133(2):399-404.

DOI

[28]
刘科梅, 聂挺, 潘栋梁, 等. 4种异黄酮抗氧化活性的构效关系[J]. 食品科学, 2016, 37(23):1-6.

DOI

LIU K M, NIE T, PAN D L, et al. Structure-activity relationship of four isoflavones for scavenging free radicals evaluated by quantum chemistry calculation[J]. Food Science, 2016, 37(23):1-6. (in Chinese)

DOI

[29]
刘晓艳. 大豆异黄酮抗氧化活性及构效关系[J]. 安徽农业科学, 2009, 35(19):8837-8839.

LIU X Y. Structure-activity relationship of soy isoflavones for scavenging free radicals[J]. Journal of Anhui Agricultural Sciences, 2009, 37(19):8837-8839. (in Chinese)

[30]
刘丽, 金宏. 大豆异黄酮抗氧化作用的研究进展[J]. 中华放射医学与防护杂志, 2003, 23(2):132-134.

LIU L, JIN H. Research progress of the antioxidant effect of soybean isoflavones[J]. Chinese Journal of Radiological Medicine and Protection, 2003, 23(2):132-134. (in Chinese)

[31]
熊昕宜, 许泽玉, 何念佳, 等. 大豆异黄酮干预肥胖大鼠肝氧化应激及炎症反应[J]. 浙江农业学报, 2022, 34(5):942-948.

DOI

XIONG X Y, XU Z Y, HE N J, et al. Effects of soy isoflavones on oxidative stress and inflammatory response in liver of rats with food borne obesity[J]. Acta Agriculturae Zhejiangensis, 2022, 34(5):942-948. (in Chinese)

DOI

[32]
KAWAKAMI Y, TSURUGASAKI W, YOSHIDA Y, et al. Regulative actions of dietary soy isoflavone on biological antioxidative system and lipid metabolism in rats[J]. Journal of Agricultural and Food Chemistry, 2004, 52(6):1764-1768.

PMID

[33]
ARORA A, BYREM T M, NAIR M G, et al. Modulation of liposomal membrane fluidity by flavonoids and isoflavonoids[J]. Archives of Biochemistry and Biophysics, 2000, 373(1):102-109.

DOI PMID

[34]
黄宽晨, 练瑶瑶, 卢玙㊂. 大豆活性成分的抗炎作用及其机制研究进展[J]. 粮食科技与经济, 2020, 45(12):71-74,133.

HUANG K C, LIAN Y Y, LU Y F, et al. Research progress on the anti-inflammatory effects and mechanisms of soybean active ingredients[J]. Grain Science and Technology and Economy, 2020, 45(12):71-74,133. (in Chinese)

[35]
KAO T H, WU W M, HUNG C F, et al. Anti-inflammatory effects of isoflavone powder produced from soybean cake[J]. Journal of Agricultural and Food Chemistry, 2007, 55(26):11068-11079.

PMID

[36]
PATERNI I, GRANCHI C, KATZENELLENBOGEN J A, et al. Estrogen receptors alpha (ERα) and beta (ERβ):subtype-selective ligands and clinical potential[J]. Steroids, 2014, 90:13-29.

DOI

[37]
ZHANG G Y, QIU R F, SUN Y C, et al. Effect of isoflavone on balloon catheter-induced neointimal hyperplasia in ovariectomised rabbit carotid artery[J]. Heart Lung and Circulation, 2013, 22(2):141-145.

DOI

[38]
WEIGT C, HERTRAMPF T, KLUXEN F M, et al. Molecular effects of ER alpha- and beta-selective agonists on regulation of energy homeostasis in obese female Wistar rats[J]. Molecular and Cellular Endocrinology, 2013, 377(1/2):147-158.

DOI

[39]
张建东, 张天东, 陶若奇, 等. 大豆异黄酮干预去势大鼠骨密度及成骨细胞雌激素受体α的表达[J]. 中国组织工程研究, 2012, 16(42):7804-7808.

ZHANG J D, ZHANG T D, TAO R Q, et al. Effect of soy isoflavones on the bone mineral density and the expression of estrogen receptor alpha in osteoblasts of ovariectomized rats[J]. Journal of Clinical Rehabilitative Tissue Engineering Research, 2012, 16(42):7804-7808. (in Chinese)

[40]
LIAO M H, TAI Y T, CHERNG Y G, et al. Genistein induces oestrogen receptor-α gene expression in osteoblasts through the activation of mitogen-activated protein kinases/NF-κB/activator protein-1 and promotes cell mineralisation[J]. British Journal of Nutrition, 2014, 111(1):55-63.

DOI

[41]
DAI J, LI Y L, ZHOU H H, et al. Genistein promotion of osteogenic differentiation through BMP2/SMAD5/RUNX2 signaling[J]. International Journal of Biological Sciences, 2013, 9(10):1089-1098.

DOI PMID

[42]
KIM M S, LEE Y S. Effects of soy isoflavone and/or estrogen treatments on bone metabolism in ovariectomized rats[J]. Journal of Medicinal Food, 2005, 8(4):439-445.

DOI

[43]
CEPEDA S B, SANDOVAL M J, CRESCITELLI M C, et al. The isoflavone genistein enhances osteoblastogenesis:signaling pathways involved[J]. Journal of Physiology and Biochemistry, 2020, 76(1):99-110.

DOI

[44]
WU G J, CHERNG Y G, CHEN J T, et al. Genistein triggers translocation of estrogen receptor-alpha in mitochondria to induce expressions of ATP synthesis-associated genes and improves energy production and osteoblast maturation[J]. The American Journal of Chinese Medicine, 2021, 49(4):901-923.

DOI

[45]
隋雨婷, 李乐乐, 刘俊业, 等. 大豆异黄酮药理作用研究进展[J]. 吉林医药学院学报, 2019, 40(4):293-296.

SUI Y T, LI L L, LIU J Y, et al. Research progress of soy isoflavone’s extract and pharmacological effects[J]. Journal of Jilin Medical University, 2019, 40(4):293-296. (in Chinese)

[46]
MAKI D G. Review:in menopause (intact uterus),estrogen+progestogen,isoflavones,and black cohosh reduce hot flashes[J]. Annals of Internal Medicine, 2017, 167(6):JC26.

DOI

[47]
KURZER M S. Hormonal effects of soy isoflavones:studies in premenopausal and postmenopausal women[J]. The Journal of Nutrition, 2000, 130(3):660S-661 S.

[48]
WANGEN K E, DUNCAN A M, MERZ-DEMLOW B E, et al. Effects of soy isoflavones on markers of bone turnover in premenopausal and postmenopausal women[J]. The Journal of Clinical Endocrinology and Metabolism, 2000, 85(9):3043-3048.

[49]
MAGEE P J, ROWLAND I R. Phyto-oestrogens,their mechanism of action:current evidence for a role in breast and prostate cancer[J]. British Journal of Nutrition, 2004, 91(4):513-531.

DOI

[50]
MA D F, ZHANG Y M, YANG T T, et al. Isoflavone intake inhibits the development of 7,12-dimethylbenz(a)anthracene(DMBA)-induced mammary tumors in normal and ovariectomized rats[J]. Journal of Clinical Biochemistry and Nutrition, 2014, 54(1):31-38.

DOI PMID

[51]
林厦菁, 陈芳, 蒋守群, 等. 大豆异黄酮对早期断奶仔猪生长性能、抗氧化功能及肠粘膜形态结构的影响[J]. 中国农业科学, 2020, 53(10):2101-2111.

DOI

LIN X J, CHEN F, JIANG S Q, et al. Effects of soybean isoflavones on growth performance,antioxidant performance and intestinal morphology of early-weaned piglets[J]. Scientia Agricultura Sinica, 2020, 53(10):2101-2111. (in Chinese)

[52]
ZHU C, YANG J S, NIE X Y, et al. Influences of dietary vitamin E,selenium-enriched yeast,and soy isoflavone supplementation on growth performance,antioxidant capacity,carcass traits,meat quality and gut microbiota in finishing pigs[J]. Antioxidants, 2022, 11(8):1510.

DOI

[53]
LI Y P, JIANG X R, CAI L, et al. Effects of daidzein on antioxidant capacity in weaned pigs and IPEC-J2 cells[J]. Animal Nutrition, 2022, 11:48-59.

DOI PMID

[54]
ZHU C, WU Y P, JIANG Z Y, et al. Dietary soy isoflavone attenuated growth performance and intestinal barrier functions in weaned piglets challenged with lipopolysaccharide[J]. International Immunopharmacology, 2015, 28(1):288-294.

DOI PMID

[55]
JIANG Z Y, JIANG S Q, LIN Y C, et al. Effects of soybean isoflavone on growth performance,meat quality,and antioxidation in male broilers[J]. Poultry Science, 2007, 86(7):1356-1362.

DOI

[56]
JIANG S Q, JIANG Z Y, LIN Y C, et al. Effects of soy isoflavone on performance,meat quality and antioxidative property of male broilers fed oxidized fish oil[J]. Asian-Australasian Journal of Animal Sciences, 2007, 20(8):1252-1257.

DOI

[57]
WANG X F, LIU G H, CAI H Y, et al. Attempts to increase inosinic acid in broiler meat by using feed additives[J]. Poultry Science, 2014, 93(11):2802-2808.

DOI PMID

[58]
SAHIN N, BALCI T A, KUCUK O, et al. Effects of 25-hydroxycholecalciferol and soy isoflavones supplementation on bone mineralisation of quail[J]. British Poultry Science, 2009, 50(6):709-715.

DOI PMID

[59]
SAHIN N, ONDERCI M, BALCI T A, et al. The effect of soy isoflavones on egg quality and bone mineralisation during the late laying period of quail[J]. British Poultry Science, 2007, 48(3):363-369.

PMID

[60]
ONDERCI M, SAHIN K, SAHIN N, et al. The effect of genistein supplementation on performance and antioxidant status of Japanese quail under heat stress[J]. Archives of Animal Nutrition, 2004, 58(6):463-471.

PMID

[61]
LI Q H, YANG S W, CHEN F, et al. Nutritional strategies to alleviate oxidative stress in sows[J]. Animal Nutrition, 2022, 9:60-73.

DOI PMID

[62]
LI Q H, YANG S W, ZHANG X L, et al. Maternal nutrition during late gestation and lactation:association with immunity and the inflammatory response in the offspring[J]. Frontiers in Immunology, 2021, 12:758525.

DOI

[63]
HU Y J, GAO K G, ZHENG C T, et al. Effect of dietary supplementation with glycitein during late pregnancy and lactation on antioxidative indices and performance of primiparous sows[J]. Journal of Animal Science, 2015, 93(5):2246-2254.

DOI PMID

[64]
LI Y, HE G R, CHEN D W, et al. Supplementing daidzein in diets improves the reproductive performance,endocrine hormones and antioxidant capacity of multiparous sows[J]. Animal Nutrition, 2021, 7(4):1052-1060.

DOI

[65]
SETCHELL K D R, MOURVAKI E, CLERICI C, et al. Dietary isoflavone aglycons from soy germ pasta improves reproductive performance of aging hens and lowers cholesterol levels of egg yolk[J]. Metabolites, 2022, 12(11):1112.

DOI

[66]
XIAO Y Q, SHAO D, TONG H B, et al. Genistein increases progesterone secretion by elevating related enzymes in chicken granulosa cells[J]. Poultry Science, 2019, 98(4):1911-1917.

DOI PMID

[67]
李帅, 温晓鹿, 蒋宗勇, 等. 妊娠后期及泌乳期添加异黄酮-S对母猪繁殖性能、抗氧化能力、免疫功能的影响[J]. 动物营养学报, 2022, 34(10):6459-6468.

DOI

LI S, WEN X L, JIANG Z Y, et al. Effects of dietary supplementation of isoflavone-S in late gestation and lactation on reproductive performance,antioxidant capacity and immune functions of sows[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6459-6468. (in Chinese)

[68]
WU H Z, YANG J, WANG S B, et al. Effects of soybean isoflavone and Astragalus polysaccharide mixture on colostrum components,serum antioxidant,immune and hormone levels of lactating sows[J]. Animals, 2021, 11(1):132.

DOI

[69]
HUANG L, MA X Y, JIANG Z Y, et al. Effects of soybean isoflavone on intestinal antioxidant capacity and cytokines in young piglets fed oxidized fish oil[J]. Journal of Zhejiang University:Science B, 2016, 17(12):965-974.

DOI

[70]
GREINER L L, STAHLY T S, STABEL T J. The effect of dietary soy genistein on pig growth and viral replication during a viral challenge[J]. Journal of Animal Science, 2001, 79(5):1272-1279.

PMID

[71]
KOGUT M H. Impact of nutrition on the innate immune response to infection in poultry[J]. Journal of Applied Poultry Research, 2009, 18(1):111-124.

DOI

[72]
KAMBOH A A, ZHU W Y. Individual and combined effects of genistein and hesperidin on immunity and intestinal morphometry in lipopolysacharide-challenged broiler chickens[J]. Poultry Science, 2014, 93(9):2175-2183.

DOI PMID

[73]
HUANG Z W, JIN S, LV Z P. Dietary genistein supplementation alters mRNA expression profile and alternative splicing signature in the thymus of chicks with lipopolysaccharide challenge[J]. Poultry Science, 2022, 101(2):101561.

DOI

[74]
JIANG S Q, JIANG Z Y, CHEN J L, et al. The effects of dietary soybean isoflavone on immunity in Chinese yellow-feathered broilers challenged with infectious bursal disease virus[J]. The Journal of Agricultural Science, 2018, 156(6):832-838.

DOI

文章导航

/