综述

鞣花酸的生理功能及其在畜禽生产中的应用

  • 阳治康 ,
  • 殷运菊 ,
  • 郑梦莉 ,
  • 陈清华 , *
展开
  • 湖南农业大学动物科学技术学院,长沙 410128
*陈清华,教授,博士生导师,E-mail:

阳治康(1997—),男,湖南岳阳人,硕士研究生,从事动物营养学与饲料资源开发与利用研究。E-mail:

收稿日期: 2022-12-26

  网络出版日期: 2023-06-08

基金资助

湖南省教育厅科学研究项目(HNJG-2020-0333)

Physiological Functions of Ellagic Acid and Its Application in Livestock and Poultry Production

  • YANG Zhikang ,
  • YIN Yunju ,
  • ZHENG Mengli ,
  • CHEN Qinghua , *
Expand
  • College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
*professor, E-mail:

Received date: 2022-12-26

  Online published: 2023-06-08

摘要

鞣花酸是一种天然存在并具有一定药理活性的多酚化合物,具有抗氧化、抗炎以及抑菌等作用。作为一种绿色环保的饲料添加剂,鞣花酸能够调节肠道菌群结构,提高动物生产性能,并在畜禽生产中具有良好的应用前景。本文综述了鞣花酸的主要生理功能及其作用机制以及在畜禽生产中的应用,为绿色饲料添加剂的开发提供参考。

本文引用格式

阳治康 , 殷运菊 , 郑梦莉 , 陈清华 . 鞣花酸的生理功能及其在畜禽生产中的应用[J]. 动物营养学报, 2023 , 35(6) : 3456 -3466 . DOI: 10.12418/CJAN2023.321

Abstract

Ellagic acid is a polyphenolic compound with natural existence and certain pharmacological activity. It has antioxidant, anti-inflammatory and antibacterial effects. As a green feed additive, ellagic acid can regulate intestinal gut microbiota, improve animal performance, and has a good application prospect in livestock and poultry production. In this paper, the main physiological functions and mechanism of ellagic acid and its application in livestock and poultry production were reviewed, which provided reference for the development of green feed additives.

随着人们对动物源性蛋白质的需求不断增加,畜禽生产方式逐渐形成规模化和集约化,特别是在发展中国家[1]。与传统养殖模式相比,规模化和集约化养殖具有提高生产效率和减少资源浪费的优势,同时也会伴随着环境污染、畜禽免疫力下降等一系列问题[2]。抗生素可通过调节肠道菌群组成、提高机体免疫力和预防疾病的发生来提高动物的生产性能[3]。然而,抗生素在畜禽生产中过度使用导致环境污染加重、致病菌耐药性增强和畜产品抗生素残留,已经引起全世界消费者的广泛关注[4-5]。近年来,有关抗生素代替品的应用研究和产品开发日益增多。鞣花酸(ellagic acid,EA)是一种天然存在的多酚化合物,通常以自由形式或衍生物形式广泛存在于各种水果、蔬菜和坚果中,特别是石榴、覆盆子、草莓、核桃、杏仁和葡萄酒中[6]。作为一种弱酸,EA因其显著的抗氧化、抗炎和抑菌等特性而备受关注,在生理条件下可以解离出带负电荷的酚酸离子,从而清除体内过多的自由基[7]。研究发现,EA还可以通过调节Kelch样ECH相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)-核因子红细胞2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)-抗氧化反应元件(antioxidant responsive element,ARE)信号通路预防或减轻疾病[8]。但是,现阶段EA在畜禽生产中应用程度较低,其主要原因在于EA的水溶性差和生物利用度低以及EA的作用机制尚不完全明确[9]。因此,本文就EA的理化性质、代谢途径和生理功能及其作用机制以及在畜禽生产中的应用进行综述,为其作为绿色饲料添加剂在畜禽生产中的应用提供参考。

1 EA的理化性质

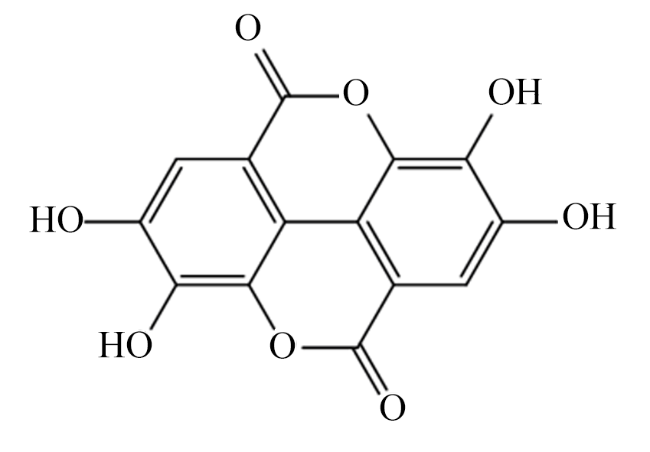
EA俗称胡颓子酸,是没食子酸的二聚体衍生物,其分子式为C14H6O8,分子结构如图1所示,含有4个环状结构代表亲脂性结构域,而4个酚羟基和2个内酯基团可作为电子受体,通过相互作用形成氢键,代表亲水性结构域[10-11]。EA是一种黄色针状晶体,同时也是一种高度热稳定性分子(熔点大于360 ℃),相对分子质量为302.19,几乎不溶于水,易溶于氢氧化钾和二甲基亚砜,不溶于醚[12]。EA能以游离形式存在,但更多的是以缩合形式(如鞣花丹宁)广泛存在于自然界中,在悬钩子属植物、水果、豆科植物和坚果中含量较高[13-14]。覆盆子、云莓、北极荆棘和黑莓等悬钩子属植物中EA含量均在1 500 mg/kg以上;草莓、石榴和圆叶葡萄等水果中EA含量超过600 mg/kg;四季豆、豇豆、豌豆和大豆等发芽豆科植物中EA含量在8.96~48.9 mg/100 g(干重);核桃等坚果中EA含量超过300 mg/kg[14-16]。研究发现,冷冻水果以及加工用于饮料生产会对EA含量产生不同的影响,通过工业加工石榴生产果汁提高了果汁中EA的含量;冷冻水果制备的果汁中EA的含量比新鲜水果制备的果汁低2倍[17]。目前,EA的提取方式主要为提取法和合成法。合成法由于产量低、工艺复杂和成本高等原因限制其广泛使用。提取法是从植物中回收和分离具有生物活性的化学物质的方法,主要包括碱水解提取法、酸水解提取法、超声波提取法、分离沉淀法和酶解法[18]。商业EA的生产是通过使用酸-甲醇混合物作为溶剂提取富含鞣花丹宁的植物组分,然后用浓盐酸(HCl)或硫酸(H2SO4)水解鞣花丹宁生成EA[19]
图1 鞣花酸的分子结构

Fig.1 Molecular structure of EA

2 EA的吸收和代谢途径

EA在植物中主要通过鞣花单宁水解产生,并在胃肠道内通过微生物代谢形成尿石素。当鞣花丹宁进入动物胃肠道后,在鞣花单宁酶的作用下,可催化葡萄糖与鞣花丹宁的六羟基二苯酸基团之间的酯键水解,产生六羟基二苯酸并在内酯酶的作用下迅速形成EA[20]。在胃肠道中产生的游离EA,由于其极低的水溶性在生物机体中的利用度较低,仅在胃和近端小肠中部分吸收。EA的摄取过程被认为是通过浓度梯度驱动的被动扩散,目前尚未发现能促进EA跨肠道上皮摄取的特异性转运蛋白[21]。肠上皮细胞中吸收的EA在儿茶酚O-甲基转移酶的催化下迅速甲基化,即在EA分子上邻二羟基的酚羟基上引入2个甲基,产生EA衍生代谢物二甲基-EA,并进一步与葡萄糖醛酸结合生成相应的二甲基-EA葡萄糖醛酸苷以增加水溶性和促进排泄[22]。当未被吸收的鞣花丹宁和游离的EA到达结肠后,会被肠道微生物进一步代谢形成尿石素[23]。尿石素是具有不同羟基取代的二苯并吡喃-6-酮衍生物,其通过鞣花酸1个内酯环的打开和脱羧以及从不同位置依次去除羟基,最终形成尿石素D、C、A和B(分别为四羟基、三羟基、二羟基和单羟基-二苯并吡喃-6-酮衍生物)[24]。与游离的EA相比,尿石素具有较高的生物利用度和吸收率,可能是因为其亲脂性增加[23]。尿石素可通过肠上皮细胞转运到血液循环中,吸收的尿石素在血液中达到微摩尔浓度,经历Ⅰ期(羟基化)和Ⅱ期(甲基化、葡萄糖醛酸化和硫酸化)酶进一步代谢,以产生更多的尿石素可溶性代谢物,这些尿石素可溶性代谢物可以储存在组织中或通过尿液排出[25]

3 EA的生理功能及其作用机制

3.1 抗氧化作用

3.1.1 EA酚羟基的抽氢反应

细胞或生物体在外界不同应激源的刺激下,产生大量有害的活性氧(reactive oxygen species,ROS)和活性氮(reactive nitrogen species,RNS),使得动物机体内氧化系统与抗氧化系统之间的平衡被打破[26]。氧化系统与抗氧化系统的不平衡将对细胞内大分子物质(蛋白质、脂质和碳水化合物)造成不可逆的损伤,进一步引起机体的组织和器官功能障碍以及代谢受阻,与生物利用度差的EA相反,尿石素更容易被吸收,尿石素可能是发挥全身抗氧化作用的原因[27]。研究表明,单一EA及其配合物均可清除体内的ROS和RNS,保护机体内大分子物质免受氧化损伤[28-29]。与抗氧化剂维生素C和维生素E一样,EA具有强抗氧化性,且EA的自由基清除能力优于维生素C和维生素E,这与其自身的功能基团密切相关;EA化学结构中的酚羟基与不同自由基之间通过抽氢反应,清除机体内过量自由基[30]。一项研究发现,EA对羟基自由基(·OH)、甲氧自由基(OCH3·)和二氧化氮自由基(NO2·)具有良好的清除率(·OH>>OCH3·>NO2·),在特定条件下,EA通过循环反应清除自由基后可再次生成EA,直至中间产物被消耗,表明EA在低浓度下也可以保护机体免受氧化应激[31]。Cervantes-Anaya等[28]研究发现,EA可缓解硫酸亚铁(FeSO4)诱导的大鼠氧化应激,主要表现为能够有效清除·OH、超氧阴离子自由基( O 2 - ·)和硝基自由基(·ONOO-)等ROS,从而缓解机体氧化损伤。乳清蛋白被广泛用作物质的载体,其可以与不同的多酚化合物结合形成络合物,以提高多酚化合物的生物利用度[32]。Diao等[29]报道,相比单独使用EA,EA与α-乳清蛋白的芳香族Ⅰ、Ⅱ活性位点结合后,有效提高了对2,2'-联氮双-(3-乙基苯并噻唑啉-6-磺酸)二胺盐[2,2'-azinobis(3-ethylbenzothiazoline-6-sulfonic acid) ammonium salt,ABTS]自由基、1,1-二苯基-2-三硝基苯肼(1,1-diphenyl-2-picrylhydrazyl,DPPH)自由基和·OH的清除活性,从而增强EA的抗氧化性能。

3.1.2 EA与金属离子形成稳定络合物

EA作为一种有效的抗氧化剂,其能够与金属离子形成配合物,并通过占据所有的配位位置抑制金属离子的催化活性[33]。Yang等[34]研究发现,在镉离子诱导的大鼠原代星形胶质细胞氧化损伤模型中,EA通过抑制钙稳态的破坏和减少ROS的产生,提高大鼠原代星形胶质细胞存活率。另一项研究发现,使用25、50和100 μmol/L EA预处理可减轻人淋巴细胞中重金属离子铬和钴的毒性[35]。EA还可以阻止铬诱导的大鼠肾组织中ROS的累积,降低对细胞膜的损伤,从而减少脂质过氧化物的形成[36]。EA作为一种新型植物螯合剂,可以与重金属铅结合形成稳定络合物,利用其高度水溶性,在生物转化过程中加速解毒,通过肝脏和肾脏代谢排出体外[37]。Ahmed等[38]研究发现,大鼠皮下注射氯化镍后再接受EA治疗,EA可与镍形成可溶性金属络合物,从而阻止金属离子与低分子质量的金属硫蛋白结合,促进镍从肾脏和肝脏中排出。其可能机制是:一方面,EA可以抑制重金属离子与抗氧化酶的巯基结合,防止其失活;另一方面,EA通过阻止金属离子取代抗氧化酶中金属辅助因子并上调抗氧化酶mRNA的表达,维持促氧化剂与内源性抗氧化剂之间的相对平衡,防止ROS和RNS过度产生引起机体器官损伤和氧化应激。

3.1.3 EA参与氧化还原信号通路

Nrf2是一种重要的抗氧化转录因子,参与氧化还原信号通路的调节。在生理状态下,Nrf2与Keap1结合并限制在细胞质中;氧化应激条件下,可以促使Nrf2与Keap1解离,使Nrf2构象发生改变转移至细胞核中与ARE结合,上调各种抗氧化酶mRNA和蛋白的表达[39]。研究发现,在百草枯诱导的仔猪氧化应激模型中,EA通过上调Nrf2-Keap1信号通路中Nrf2蛋白的表达并介导其转运至细胞核中,从而促进Nrf2信号通路下游抗氧化酶血红素加氧酶-1(heme oxygenase-1,HO-1)和醌氧化还原酶1(quinone oxidoreductase 1,NQO1)的表达,从而缓解机体应激损伤[40]。Zhu等[41]研究表明,在白细胞介素-1β(interleukin-1β,IL-1β)诱导的软骨细胞氧化应激中,EA可通过介导Nrf2-Keap1信号通路缓解氧化损伤。另一项研究发现,EA通过激活Nrf2介导的信号通路上调谷胱甘肽过氧化物酶1(glutathione peroxidase 1,GSH-Px1)的表达,从而提高抗氧化性能[42]
综上可知,细胞或生物体在受到外界不同应激源刺激时,EA主要是通过3种途径发挥抗氧化作用(图2):1)EA通过自身的功能基团(酚羟基和内酯基团)清除ROS和RNS;2)EA与金属离子结合形成稳定络合物,从而防止金属离子的促氧化作用;3)EA通过激活Nrf2-Keap1信号通路上调抗氧化酶的表达,从而缓解机体氧化应激。
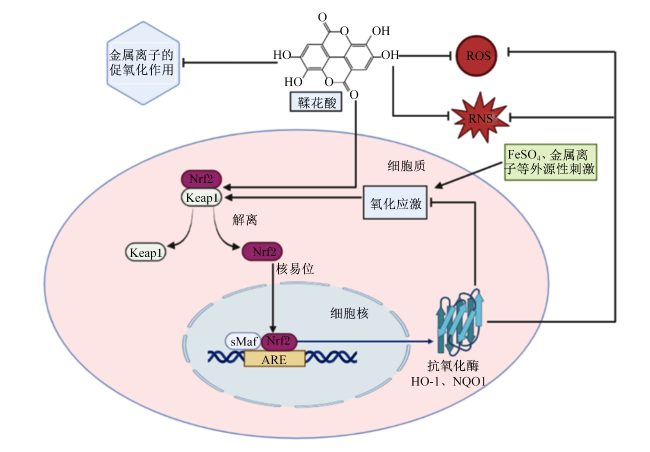
图2 鞣花酸抗氧化作用机制图

Nrf2:核因子红细胞2相关因子2 nuclear factor erythroid 2-related factor 2;Keap1:Kelch样ECH相关蛋白1 Kelch-like ECH-associated protein 1;sMaf:小MAF small MAF;ARE:抗氧化反应元件 antioxidant responsive element;ROS:活性氧 reactive oxygen species;RNS:活性氮 reactive nitrogen species;HO-1:血红素加氧酶-1 heme oxygenase-1;NQO1:醌氧化还原酶 quinone oxidoreductase 1。

Fig.2 Diagram of antioxidation mechanism of EA[28-29,33,41]

3.2 抗炎作用

3.2.1 EA通过降低细胞炎症因子的表达缓解炎症反应

白细胞介素-6(interleukin-6,IL-6)、IL-1β和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)是炎症反应中重要介质,通常用作全身促炎细胞因子激活的标记物[43]。Cisneros-Zevallos等[44]发现,在脂多糖(lipopolysaccharide,LPS)诱导的成熟脂肪细胞炎症中,EA及其衍生物尿石素A和B可下调炎症过程相关细胞因子TNF-αIL-6、诱导型一氧化氮合酶(inducible nitric oxide synthase,iNOS)和单核细胞趋化蛋白-1(monocyte chemotactic protein-1,MCP-1)的表达。体外研究表明,EA可缓解LPS诱导的猪小肠黏膜上皮细胞(IPEC-J2)活力的损失,以及下调TNF-αIL-6的表达[45]。在一项关于脑缺血/再灌注引发的大鼠脑组织炎症反应的研究中,大鼠通过管饲法分别接受50、75和100 mg/kg EA,每天3次,持续1周,结果显示,100 mg/kg的EA可调节核因子-κB(nuclear factor-kappa B,NF-κB)的表达,减少环氧合酶-2(cyclooxygenase-2,COX-2)和iNOS的活性,从而有效降低炎症标志物TNF-α和IL-1β的含量,缓解脑缺血后的细胞死亡[46]。EA还可以通过激活蛋白激酶C(protein kinase C,PKC)和丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)降低促炎标志物IL-1β、干扰素-γ(interferon-γ,INF-γ)和TNF-α的mRNA表达水平以及INF-γ和TNF-α的蛋白质合成量[47]。大量研究证明,在外源性刺激的诱导下,EA可以降低小鼠不同组织如睾丸组织[48]、肝脏[49]、肾脏[50]、脊髓组织[51]和小肠[52]中TNF-α和IL-1β的含量。

3.2.2 EA通过调节TLR4/NF-κB炎症信号通路降低炎症因子的表达

NF-κB是调节炎症信号通路的重要因子。在静息状态下,NF-κB与其抑制蛋白核因子κB抑制因子-α(inhibitor of nuclear factor-kappa B-α,IκB-α)结合变得不活跃;当受到炎症因子刺激时,可引起NF-κB与其抑制蛋白IκB-α的解离,NF-κB由无活性状态转变为活性状态并从细胞质中转移到细胞核,并与特定的位点结合,从而诱导炎症因子IL-1βTNF-αIL-6的表达[53]。Toll样受体(Toll-like receptors,TLRS)是先天免疫细胞表面重要的模式识别受体,也是非特异性免疫和特异性免疫之间的桥梁[54]。高迁移率族蛋白1(high mobility group box 1,HMGB1)是一种高度保守的蛋白,主要位于细胞核内,在细胞运动和DNA的转录、复制、修复中起重要作用[55]。Zhou等[56]研究表明,EA通过HMGB1-TLR4-NF-κB信号通路改善链脲佐菌素诱导的小鼠氧化性肾损伤,其具体的机制是EA阻止HMGB1与其受体TLR4结合,下调TLR4下游蛋白如白细胞介素1受体相关激酶4(interleukin-1 receptor-associated kinase 4,IRAK4)、肿瘤坏死因子受体相关因子6(tumor necrosis factor receptor associated factor 6,TRAF6)、核因子-κB抑制剂激酶β(inhibitor of nuclear factor-kappa B kinase β,IKKβ)的表达,使NF-κB活化进一步降低,使得IL-6和TNF-α等细胞因子的含量也随之减少。最近的一项研究发现,肉鸡饲粮中添加鞣花酸可通过调节炎症信号通路和盲肠菌群来改善产气荚膜梭菌诱导的肉鸡亚临床坏死性肠炎,主要表现为EA可调节TLR/NF-κB和Janus激酶3(Janus kinase 3,JAK3)/信号转导和转录激活子6(signal transducers and activators of transcription 6,STAT6)炎症信号通路,抑制TNF-α、IL-1β、IL-6、白细胞介素-8(interleukin-8,IL-8)和iNOS等炎性介质的释放,防止机体炎症反应,增加盲肠中厚壁菌门的相对丰度,抑制肠道屏障损伤,促进养分的吸收,提高肉鸡的生长性能[57]。Zhao等[58]报道,EA也可以通过TLR4/髓系分化因子88(myeloid differentiation factor 88,MyD88)/NF-κB信号通路降低小鼠肝脏组织中炎症细胞因子IL-6、IL-1β和TNF-α的含量以及抑制肝脏中炎症相关基因TLR4、MyD88、COX-2和NF-κB的表达,缓解酒精性肝损伤引起的小鼠炎症反应。

3.2.3 EA通过降低黏附分子在细胞中表达阻断炎症的发生

黏附分子在内皮细胞中的表达被认为是炎症早期形成的关键步骤。研究发现,EA通过抑制细胞膜上的烟酰胺腺嘌呤二核苷酸磷酸(NADPH)氧化酶的激活,进一步降低细胞内ROS的快速增加和减少p38丝裂原活化蛋白激酶(p38 mitogen-activated protein kinase,p38MAPK)的磷酸化,抑制NF-kB介导的炎症信号分子IL-6和IL-8以及黏附分子细胞间黏附分子-1(intercellular adhesion molecule-1,ICAM-1)、血管细胞黏附分子-1(vascular cell adhesion molecule-1,VCAM-1)和E-选择素(E-selectin)的表达,并刺激THP-1(人急性单核细胞白血病细胞系)对人脐静脉内皮细胞的黏附[59]。EA是通过抑制NADPH氧化酶诱导的超氧化物过量产生,下调iNOS活性抑制一氧化氮的释放,增强细胞抗氧化防御以及减弱氧化的低密度脂蛋白诱导的内皮细胞上的凝集素样受体含量升高和内皮一氧化氮合酶(endothelial nitric oxide synthase,eNOS)活性降低来发挥其保护作用。此外,EA还可以减弱长期暴露于紫外线的小鼠背部皮肤组织中IL-1β和IL-6的释放,进一步减轻角质形成ICAM-1的表达,表明EA可以通过饮食干预减少皮肤褶皱和紫外线引起的皮肤炎症[60]
综上所述,EA发挥抗炎作用主要是通过3个途径(图3)实现的:1)EA通过降低不同细胞或组织中炎症因子的含量,缓解炎症反应;2)当受到炎症因子的刺激,EA可通过调节TLR4/NF-κB炎症信号通路降低炎症因子的表达,从而抑制炎症的发生;3)EA可降低黏附分子在内皮细胞中的表达,从而在早期阻断炎症的发生。
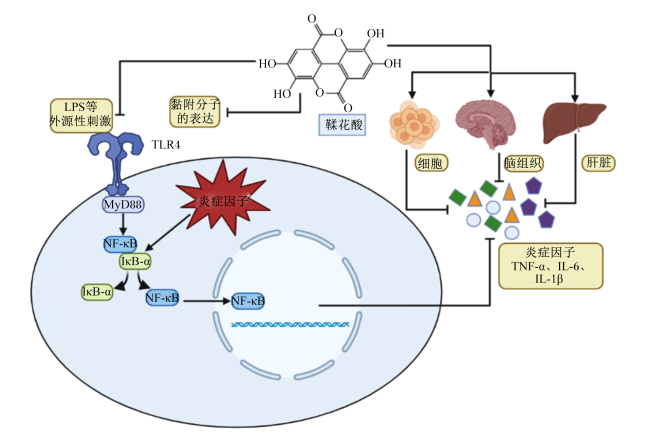
图3 鞣花酸抗炎作用机制图

NF-κB:核因子-κB nuclear factor-kappa B;IκB-α:核因子-κB抑制因子-α inhibitor of nuclear factor-kappa B-α;LPS:脂多糖 lipopolysaccharide;TLR4:Toll样受体4 Toll-like receptor 4;MyD88:髓系分化因子88 myeloid differentiation factor 88;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-1β:白细胞介素-1β interleukin-1β;IL-6:白细胞介素-6 interleukin-6。

Fig.3 Diagram of anti-inflammatory action mechanism of EA[44-49,57,59]

3.3 抑菌作用

3.3.1 EA破坏细胞膜完整性、改变细菌形态结构和抑制细菌的运动

研究表明,EA对不同细菌的抑菌能力具有差异性且与载体材料联合使用可增强其抑菌活性。Hussein-Al-Ali等[61]研究发现,5 mg/mL的EA对奇异变形杆菌、大肠杆菌和肺炎克雷伯菌等细菌的抑菌圈直径分别为(1.65±0.07) mm、(1.60±0.14) mm、(1.50±0.14) mm,且EA-石墨烯纳米复合材料同等条件下的抑菌能力优于单独使用EA。相较于单独的银纳米颗粒或EA,银纳米粒子与EA形成的复合物可显著降低固定相培养物中大肠杆菌或金黄色葡萄球菌的数量[62]。杨笑笑等[63]研究发现,石榴皮粗提取物对大肠杆菌和金黄色葡萄球菌的抑菌圈直径分别为16.80和20.19 mm,而EA对大肠杆菌和金黄色葡萄球菌的抑菌圈直径分别为26.28和22.93 mm,表明EA能够有效抑制革兰氏阴性菌和革兰氏阳性菌,且EA整体效果优于石榴皮粗提取物。EA属于鞣质类化合物,鞣质能够与菌体细胞作用,降低细菌代谢率并抑制细菌菌株的生长,变形链球菌生成的水不溶性葡聚糖及其对唾液涂层-羟基磷灰石(saliva coated-hydroxyapatite,S-HA)的黏附性降低,破坏了细胞壁的完整性,增加了细胞膜的通透性,导致细胞内容物渗漏,从而起到抑菌作用[64]。研究发现,经EA及其衍生物处理的金黄色葡萄球菌形成生物膜的能力降低[65]。此外,EA和四环素(250 μg/mL+0.312 μg/mL)组合可有效抑制痤疮丙酸杆菌形成生物膜,并减少细胞外聚合物的产生,从而使细菌更容易受到免疫系统的吞噬[66]。De等[67]研究表明,EA对幽门螺旋杆菌具有良好的抑菌性能,其抑菌机制为EA促使幽门螺旋杆菌形态由非培养球形转变为球形,改变细菌细胞壁肽聚糖和破坏鞭毛结构,抑制细菌的运动并降低细菌在宿主胃肠道黏膜上的定植。

3.3.2 EA破坏真菌细胞膜结构和调节相关酶的活性

麦角甾醇俗称麦角固醇,作为真菌细胞膜结构的重要组成部分,通过与磷脂结合维持膜结构的稳定性,麦角甾醇的生物合成经由较复杂的过程,该过程由多种酶的催化完成[68]。14α-去甲基化酶(CYP51)作为甾醇生物合成途径中的关键酶,可以催化麦角甾醇核中14α-甲基的去除,从而干扰甾醇的生物合成[69]。Li等[70]在研究EA对不同真菌菌株的体外和体内抑制作用时发现,EA对除光滑假丝酵母菌外的所有皮肤癣菌试验菌株均具有抑制作用,最小抑菌浓度(MIC)均在18.75~58.33 μg/mL,其中对红色毛癣菌的抗真菌活性最强,MIC为18.75 μg/mL,EA还可以显著降低红色毛癣菌膜中CYP51的活性。其机制是EA通过抑制CYP51的活性影响真菌细胞膜中麦角甾醇的生物合成,进而发挥广谱的抗真菌活性。同样,EA对红色毛癣菌、白色念珠菌和近平滑念珠菌等临床常见真菌也有较强的抑制作用,其中红色毛癣菌对EA最为敏感,EA能显著抑制其生长;EA作用于红色毛癣菌后,其表面褶皱不平,菌体破裂,细胞内容物溢出以及麦角甾醇生物合成相关基因的相对表达量下调[71]。由此可以说明,EA的抑菌机制是通过破坏真菌细胞膜结构,促进其坏死以及下调真菌细胞膜成分麦角甾醇生物合成相关的基因表达。
综上可知,EA的抑菌作用主要是通过2种途径实现的:1)EA可以破坏细胞膜完整性,导致细胞内容物溢出,从而起到抑菌作用,还可以改变细菌形态结构,抑制细菌的运动,降低在宿主胃肠道的繁殖,从而降低病原菌的存活率;2)EA可以破坏真菌细胞膜结构和调节相关酶的活性,从而干扰细胞膜重要组成成分麦角甾醇的生物合成。

4 EA在畜禽生产中的应用

EA已应用于家禽生产中,它具有改善家禽生长或生产性能和抗氧化性能的作用。Gul等[72]研究发现,在蛋鸡饲粮中添加100 mg/kg EA可提高蛋鸡的采食量、末重和饲料转化率,且添加EA显著提高了产蛋率以及雏鸡孵化率,减少了破蛋率和胚胎死亡率。据Iflazoglu Mutlu等[73]报道,在鹌鹑的饲粮中添加500 mg/kg EA可改善重金属铅引起的采食量和产蛋量下降,还可以降低肝脏和肾脏组织中MDA含量以及升高谷胱甘肽过氧化物酶(GSH-Px)和过氧化氢酶(CAT)活性。EA提高家禽生长或生产性能的机制可能是通过:1)增加抗氧化酶的活性,清除体内ROS,保护机体免受氧化损伤;2)改善机体肠道形态结构,促进小肠发育[74]。Tang等[57]研究发现,饲粮中添加500 mg/kg的EA增强了肉鸡肠道黏膜的抗炎、抗氧化作用和肠道屏障功能,从而阻止有害物质的侵入,最终改善肉鸡的生长性能。缓解家禽热应激是提高生长性能的重要措施之一。Yang等[75]研究表明,添加EA可显著降低热应激肉鸡盲肠中链球菌属、瘤胃球菌属和放线菌属的相对丰度,且呈剂量依赖性;同时发现盲肠中上述菌群的相对丰度与血清中LPS、MDA含量和二胺氧化酶活性呈正相关,而与血清中GSH-Px、SOD和CAT活性呈负相关,表明EA可通过调节肠道菌群来提高肉鸡的抗氧化能力和肠道屏障功能,缓解热应激引起的生长性能负面效果。Wang等[76]发现,在黄羽肉鸡饲粮中添加200 mg/kg EA后,可显著增加肉鸡的平均日增重和饲料报酬,产生这一有益效果的原因可能是EA可提高肠道消化酶的活性,改善肠道绒毛形态结构,从而增强肠道对营养物质的消化和吸收。
在猪上,EA具有缓解断奶仔猪肠道应激、改善仔猪生长性能的功效。肠道作为最容易受到病原微生物影响的器官,越来越多的研究关注断奶仔猪肠道菌群的变化。在集约化养猪生产中,仔猪的早期断奶往往容易造成严重的肠道损伤、免疫功能障碍和采食量下降等问题[77]。研究发现,在饲粮中补充200 mg/kg的EA可以上调断奶仔猪盲肠中罗伊氏乳杆菌和淀粉乳杆菌的相对丰度,有效缓解百草枯引起的肝脏氧化损伤和肠道受损[40,78]。Lu等[45]研究发现,在断奶仔猪饲粮中添加500 mg/kg EA后,空肠黏膜转录组测序结果表明存在401个基因差异表达,且238个下调基因显著富集于10条通路,其中7条通路与免疫应答高度相关;同时还发现EA可显著提高保加利亚乳杆菌和罗伊氏乳杆菌的相对丰度。以上结果表明,EA可通过调节断奶仔猪肠道免疫应答过程,上调肠道有益菌群的丰度,从而改善肠道健康,促进仔猪生长。Qin等[79]也发现,给断奶仔猪口服补充0.1%EA和2 mL生理盐水的基础饲粮(EA组)可提高空肠紧密连接蛋白的表达以及绒毛高度和绒毛高度与隐窝深度的比值,且EA组空肠菌群α多样性以及肠道有益菌(瘤胃球菌科和梭状芽孢杆菌)数量显著升高,还可增加仔猪的平均日采食量和平均日增重,表明EA可以调节猪肠道菌群结构,缓解肠道损伤,改善生长性能。

5 小结

综上所述,EA具有多种生理功能,其作为一种新型绿色饲料添加剂可以提高畜禽的生长性能,调节肠道菌群。EA具有来源广泛、生物安全性高、无药物性残留等优点,在禁抗大背景下具有良好的应用前景。目前,EA的研究主要集中于临床治疗,在畜禽生产中的应用较少,还存在如下一些问题:1)EA具有溶解度低和渗透性差等特点,极大地降低了其生物利用率,需要考虑与不同载体复配以提高利用率;2)EA在畜牧生产中使用较少,需要探究其在不同动物中的应用情况以及合理的添加量;3)EA的作用机制有待深入研究。相信随着对EA研究的不断深入,其在畜禽生产中将会得到更广泛的应用。
[1]
TIAN M, HE X M, FENG Y Z, et al. Pollution by antibiotics and antimicrobial resistance in livestock and poultry manure in China,and countermeasures[J]. Antibiotics, 2021, 10(5):539.

DOI

[2]
HU Y N, CHENG H F, TAO S. Environmental and human health challenges of industrial livestock and poultry farming in China and their mitigation[J]. Environment International, 2017, 107:111-130.

DOI PMID

[3]
LILLEHOJ H, LIU Y H, CALSAMIGLIA S, et al. Phytochemicals as antibiotic alternatives to promote growth and enhance host health[J]. Veterinary Research, 2018, 49(1):76.

DOI PMID

[4]
HERSHBERG R. Antibiotic-independent adaptive effects of antibiotic resistance mutations[J]. Trends in Genetics, 2017, 33(8):521-528.

DOI PMID

[5]
LUNDBORG C S, TAMHANKAR A J. Antibiotic residues in the environment of South East Asia[J]. BMJ, 2017, 358:j2440.

[6]
DEROSA G, MAFFIOLI P, SAHEBKAR A. Ellagic acid and its role in chronic diseases[J]. Advances in Experimental Medicine and Biology, 2016, 928:473-479.

PMID

[7]
SHARIFI-RAD J, QUISPE C, CASTILLO C M S, et al. Ellagic acid:a review on its natural sources,chemical stability,and therapeutic potential[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022:3848084.

[8]
WANG Q H, BOTCHWAY B O A, ZHANG Y, et al. Ellagic acid activates the Keap1-Nrf2-ARE signaling pathway in improving Parkinson’s disease:a review[J]. Biomedicine & Pharmacotherapy, 2022, 156:113848.

DOI

[9]
NYAMBA I, LECHANTEUR A, SEMDÉ R, et al. Physical formulation approaches for improving aqueous solubility and bioavailability of ellagic acid:a review[J]. European Journal of Pharmaceutics and Biopharmaceutics, 2021, 159:198-210.

DOI

[10]
ROMMEL A, WROLSTAD R E. Ellagic acid content of red raspberry juice as influenced by cultivar,processing,and environmental factors[J]. Journal of Agricultural and Food Chemistry, 1993, 41(11):1951-1960.

DOI

[11]
SEPÚLVEDA L, ASCACIO A, RODRÍGUEZ-HERRERA R, et al. Ellagic acid:biological properties and biotechnological development for production processes[J]. African Journal of Biotechnology, 2011, 10(22):4518-4523.

[12]
BALA I, BHARDWAJ V, HARIHARAN S, et al. Analytical methods for assay of ellagic acid and its solubility studies[J]. Journal of Pharmaceutical and Biomedical Analysis, 2006, 40(1):206-210.

PMID

[13]
WILLIAMS D J, EDWARDS D, PUN S, et al. Profiling ellagic acid content:the importance of form and ascorbic acid levels[J]. Food Research International, 2014, 66:100-106.

DOI

[14]
DANIEL E M, KRUPNICK A S, HEUR Y H, et al. Extraction,stability, and quantitation of ellagic acid in various fruits and nuts[J]. Journal of Food Composition and Analysis, 1989, 2(4):338-349.

DOI

[15]
KOPONEN J M, HAPPONEN A M, MATTILA P H, et al. Contents of anthocyanins and ellagitannins in selected foods consumed in Finland[J]. Journal of Agricultural and Food Chemistry, 2007, 55(4):1612-1619.

DOI PMID

[16]
GAN R Y, CHAN C L, YANG Q Q, et al. 9-Bioactive compounds and beneficial functions of sprouted grains[M]//FENG H,NEMZER B,DEVRIES J W. Sprouted grains. Duxford: Woodhead Publishing, 2019:191-246.

[17]
GIL M I, TOMÁS-BARBERÁN F A, HESS-PIERCE B, et al. Antioxidant activity of pomegranate juice and its relationship with phenolic composition and processing[J]. Journal of Agricultural and Food Chemistry, 2000, 48(10):4581-4589.

DOI PMID

[18]
熊淑婷. 叶下珠化学成分及鞣花酸制备工艺研究[D]. 硕士学位论文. 杭州: 浙江工业大学, 2020.

XIONG S T. Investigation on chemical constituents of Phyllanthus urinaria L. and preparation of ellagic acid[D]. Master’s Thesis. Hangzhou: Zhejiang University of Technology, 2020. (in Chinese)

[19]
LEI Z, JERVIS J, HELM R F. Use of methanolysis for the determination of total ellagic and gallic acid contents of wood and food products[J]. Journal of Agricultural and Food Chemistry, 2001, 49(3):1165-1168.

PMID

[20]
ASCACIO-VALDÉS J A, BUENROSTRO J J, DE LA CRUZ R, et al. Fungal biodegradation of pomegranate ellagitannins[J]. Journal of Basic Microbiology, 2014, 54(1):28-34.

DOI

[21]
GONZÁLEZ-BARRIO R, BORGES G, MULLEN W, et al. Bioavailability of anthocyanins and ellagitannins following consumption of raspberries by healthy humans and subjects with an ileostomy[J]. Journal of Agricultural and Food Chemistry, 2010, 58(7):3933-3939.

DOI

[22]
LARROSA M, GARCÍA-CONESA M T, ESPÍN J C, et al. Ellagitannins, ellagic acid and vascular health[J]. Molecular Aspects of Medicine, 2010, 31(6):513-539.

DOI PMID

[23]
ESPÍN J C, GONZÁLEZ-BARRIO R, CERDÁ B, et al. Iberian pig as a model to clarify obscure points in the bioavailability and metabolism of ellagitannins in humans[J]. Journal of Agricultural and Food Chemistry, 2007, 55(25):10476-10485.

PMID

[24]
ESPÍN J C, LARROSA M, GARCÍA-CONESA M T, et al. Biological significance of urolithins,the gut microbial ellagic acid-derived metabolites:the evidence so far[J]. Evidence-Based Complementary and Alternative Medicine, 2013, 2013:270418.

[25]
KUMAR SINGH A, CABRAL C, KUMAR R, et al. Beneficial effects of dietary polyphenols on gut microbiota and strategies to improve delivery efficiency[J]. Nutrients, 2019, 11(9):2216.

DOI

[26]
SIES H. Oxidative stress:from basic research to clinical application[J]. The American Journal of Medicine, 1991, 91(Supplement 3):S31-S38.

[27]
DJEDJIBEGOVIC J, MARJANOVIC A, PANIERI E, et al. Ellagic acid-derived urolithins as modulators of oxidative stress[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:5194508.

[28]
CERVANTES-ANAYA N, AZPILCUETA-MORALES G, ESTRADA-CAMARENA E, et al. Pomegranate and its components,punicalagin and ellagic acid,promote antidepressant,antioxidant,and free radical-scavenging activity in ovariectomized rats[J]. Frontiers in Behavioral Neuroscience, 2022, 16:836681.

DOI

[29]
DIAO M X, LIANG Y, ZHAO J Q, et al. Complexation of ellagic acid with α-lactalbumin and its antioxidant property[J]. Food Chemistry, 2022, 372:131307.

DOI

[30]
TIWARI M K, MISHRA P C. Modeling the scavenging activity of ellagic acid and its methyl derivatives towards hydroxyl,methoxy,and nitrogen dioxide radicals[J]. Journal of Molecular Modeling, 2013, 19(12):5445-5456.

DOI

[31]
GALANO A, FRANCISCO MARQUEZ M, PÉREZ-GONZÁLEZ A. Ellagic acid:an unusually versatile protector against oxidative stress[J]. Chemical Research in Toxicology, 2014, 27(5):904-918.

DOI

[32]
WU G, HUI X D, GONG X, et al. Functionalization of bovine whey proteins by dietary phenolics from molecular-level fabrications and mixture-level combinations[J]. Trends in Food Science & Technology, 2021, 110:107-119.

[33]
DALVI L T, MOREIRA D C, ANDRADE R,Jr, et al. Ellagic acid inhibits iron-mediated free radical formation[J]. Spectrochimica Acta Part A:Molecular and Biomolecular Spectroscopy, 2017, 173:910-917.

DOI

[34]
YANG C S, TZOU B C, LIU Y P, et al. Inhibition of cadmium-induced oxidative injury in rat primary astrocytes by the addition of antioxidants and the reduction of intracellular calcium[J]. Journal of Cellular Biochemistry, 2008, 103(3):825-834.

DOI

[35]
BODIGA V L, VEMURI P K, KUDLE M R, et al. Ellagic acid from Terminalia arjuna fruits protects against chromium and cobalt toxicity in primary human lymphocytes[J]. Biological Trace Element Research, 2022, 200(6):2698-2708.

DOI

[36]
CUEVAS-MAGAÑA M Y, VEGA-GARCÍA C C, LEÓN-CONTRERAS J C, et al. Ellagic acid ameliorates hexavalent chromium-induced renal toxicity by attenuating oxidative stress,suppressing TNF-α and protecting mitochondria[J]. Toxicology and Applied Pharmacology, 2022, 454:116242.

DOI

[37]
BIDANCHI R M, LALRINDIKA L, KHUSHBOO M, et al. Antioxidative,anti-inflammatory and anti-apoptotic action of ellagic acid against lead acetate induced testicular and hepato-renal oxidative damages and pathophysiological changes in male Long Evans rats[J]. Environmental Pollution, 2022, 302:119048.

DOI

[38]
AHMED S, RAHMAN A, SALEEM M, et al. Ellagic acid ameliorates nickel induced biochemical alterations:diminution of oxidative stress[J]. Human & Experimental Toxicology, 1999, 18(11):691-698.

[39]
CUADRADO A, ROJO A I, WELLS G, et al. Therapeutic targeting of the NRF2 and KEAP1 partnership in chronic diseases[J]. Nature Reviews Drug Discovery, 2019, 18(4):295-317.

DOI PMID

[40]
XIAO Y X, HUANG R, WANG N, et al. Ellagic acid alleviates oxidative stress by mediating Nrf2 signaling pathways and protects against paraquat-induced intestinal injury in piglets[J]. Antioxidants, 2022, 11(2):252.

DOI

[41]
ZHU W R, TANG H, LI J C, et al. Ellagic acid attenuates interleukin-1β-induced oxidative stress and exerts protective effects on chondrocytes through the Kelch-like ECH-associated protein 1 (Keap1)/nuclear factor erythroid 2-related factor 2 (Nrf2) pathway[J]. Bioengineered, 2022, 13(4):9249-9263.

DOI

[42]
ZHANG X Y, WANG S L, WU Y J, et al. Ellagic acid alleviates diquat-induced jejunum oxidative stress in C57BL/6 mice through activating Nrf2 mediated signaling pathway[J]. Nutrients, 2022, 14(5):1103.

DOI

[43]
YIN S G, YOU T, TANG J Y, et al. Dietary licorice flavonoids powder improves serum antioxidant capacity and immune organ inflammatory responses in weaned piglets[J]. Frontiers in Veterinary Science, 2022, 9:942253.

DOI

[44]
CISNEROS-ZEVALLOS L, BANG W Y, DELGADILLO-PUGA C. Ellagic acid and urolithins A and B differentially regulate fat accumulation and inflammation in 3T3-L1 adipocytes while not affecting adipogenesis and insulin sensitivity[J]. International Journal of Molecular Sciences, 2020, 21(6):2086.

DOI

[45]
LU Y J, ZHAO M W, MO J Y, et al. Dietary supplementation ellagic acid on the growth,intestinal immune response,microbiota,and inflammation in weaned piglets[J]. Frontiers in Veterinary Science, 2022, 9:980271.

DOI

[46]
HASSONIZADEH FALAHIEH K, SARKAKI A, EDALATMANESH M, et al. Ellagic acid attenuates post-cerebral ischemia and reperfusion behavioral deficits by decreasing brain tissue inflammation in rats[J]. Iranian Journal of Basic Medical Sciences, 2020, 23(5):645-653.

DOI PMID

[47]
FIRDAUS F, ZAFEER M F, ANIS E, et al. Ellagic acid attenuates arsenic induced neuro-inflammation and mitochondrial dysfunction associated apoptosis[J]. Toxicology Reports, 2018, 5:411-417.

DOI PMID

[48]
HOSSEINZADEH A, MEHRZADI S, SIAHPOOSH A, et al. The ameliorative effect of ellagic acid on di-(2-ethylhexyl) phthalate-induced testicular structural alterations,oxidative stress,inflammation and sperm damages in adult mice[J]. Reproductive Biology and Endocrinology, 2021, 19(1):146.

DOI

[49]
KARIMI M Y, FATEMI I, KALANTARI H, et al. Ellagic acid prevents oxidative stress,inflammation,and histopathological alterations in acrylamide-induced hepatotoxicity in Wistar rats[J]. Journal of Dietary Supplements, 2020, 17(6):651-662.

DOI

[50]
SAEED Z M, KHATTAB M I, KHORSHID N E, et al. Ellagic acid and cilostazol ameliorate amikacin-induced nephrotoxicity in rats by downregulating oxidative stress,inflammation,and apoptosis[J]. PLoS One, 2022, 17(7):e0271591.

DOI

[51]
KIASALARI Z, AFSHIN-MAJD S, BALUCHNEJADMOJARAD T, et al. Ellagic acid ameliorates neuroinflammation and demyelination in experimental autoimmune encephalomyelitis:involvement of NLRP3 and pyroptosis[J]. Journal of Chemical Neuroanatomy, 2021, 111:101891.

DOI

[52]
KIM D H, SIM Y, HWANG J H, et al. Ellagic acid prevents binge alcohol-induced leaky gut and liver injury through inhibiting gut dysbiosis and oxidative stress[J]. Antioxidants, 2021, 10(9):1386.

DOI

[53]
LIN Z, LIN C, FU C C, et al. The protective effect of ellagic acid (EA) in osteoarthritis:an in vitro and in vivo study[J]. Biomedicine & Pharmacotherapy, 2020, 125:109845.

DOI

[54]
KAWAI T, AKIRA S. The role of pattern-recognition receptors in innate immunity:update on Toll-like receptors[J]. Nature Immunology, 2010, 11(5):373-384.

DOI

[55]
KANG R, CHEN R C, ZHANG Q H, et al. HMGB1 in health and disease[J]. Molecular Aspects of Medicine, 2014, 40:1-116.

DOI PMID

[56]
ZHOU B H, LI Q L, WANG J, et al. Ellagic acid attenuates streptozocin induced diabetic nephropathy via the regulation of oxidative stress and inflammatory signaling[J]. Food and Chemical Toxicology, 2019, 123:16-27.

DOI PMID

[57]
TANG Y, ZHANG X Y, WANG Y N, et al. Dietary ellagic acid ameliorated Clostridium perfringens-induced subclinical necrotic enteritis in broilers via regulating inflammation and cecal microbiota[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):47.

DOI

[58]
ZHAO L, MEHMOOD A, SOLIMAN M M, et al. Protective effects of ellagic acid against alcoholic liver disease in mice[J]. Frontiers in Nutrition, 2021, 8:744520.

DOI

[59]
LEE W J, OU H C, HSU W C, et al. Ellagic acid inhibits oxidized LDL-mediated LOX-1 expression,ROS generation,and inflammation in human endothelial cells[J]. Journal of Vascular Surgery, 2010, 52(5):1290-1300.

DOI

[60]
BAE J Y, CHOI J S, KANG S W, et al. Dietary compound ellagic acid alleviates skin wrinkle and inflammation induced by UV-B irradiation[J]. Experimental Dermatology, 2010, 19(8):e182-e190.

DOI

[61]
HUSSEIN-AL-ALI S H, ABUDOLEH S M, HUSSEIN M Z, et al. Graphene oxide-ellagic acid nanocomposite as effective anticancer and antimicrobial agent[J]. IET Nanobiotechnology, 2021, 15(1):79-89.

DOI

[62]
BARNABY S N, YU S M, FATH K R, et al. Ellagic acid promoted biomimetic synthesis of shape-controlled silver nanochains[J]. Nanotechnology, 2011, 22(22):225605.

DOI

[63]
杨笑笑, 卢婕, 曹玉华, 等. 石榴皮中鞣花酸的美白及抑菌性能的研究[C]// 第十届中国化妆品学术研讨会论文集. 杭州: 中国香料香精化妆品工业协会, 2014:351-355.

YANG X X, LU J, CAO Y H, et al. Study on whitening and antibacterial activity of ellagic acid in pomegranate peel[C]// Proceedings of the Tenth China Cosmetics Symposium. Hangzhou: China Association of Fragrance Flavor and Cosmetic Industries, 2014:351-355. (in Chinese)

[64]
LOO W T Y, JIN L J, CHEUNG M N B, et al. Evaluation of ellagic acid on the activities of oral bacteria with the use of adenosine triphosphate (ATP) bioluminescence assay[J]. African Journal of Biotechnology, 2010, 9(25):3938-3943.

[65]
QUAVE C L, ESTÉVEZ-CARMONA M, COMPADRE C M, et al. Ellagic acid derivatives from Rubus ulmifolius inhibit Staphylococcus aureus biofilm formation and improve response to antibiotics[J]. PLoS One, 2012, 7(1):e28737.

DOI

[66]
SIVASANKAR C, MARUTHUPANDIYAN S, BALAMURUGAN K, et al. A combination of ellagic acid and tetracycline inhibits biofilm formation and the associated virulence of Propionibacterium acnes in vitro and in vivo[J]. Biofouling, 2016, 32(4):397-410.

DOI

[67]
DE R, SARKAR A, GHOSH P, et al. Antimicrobial activity of ellagic acid against Helicobacter pylori isolates from India and during infections in mice[J]. Journal of Antimicrobial Chemotherapy, 2018, 73(6):1595-1603.

DOI

[68]
MYSIAKINA I S, FUNTIKOVA N S. [The role of sterols in morphogenetic processes and dimorphism in fungi][J]. Mikrobiologiia, 2007, 76(1):5-18.

PMID

[69]
BELLAMINE A, LEPESHEVA G I, WATERMAN M R. Fluconazole binding and sterol demethylation in three CYP51 isoforms indicate differences in active site topology[J]. Journal of Lipid Research, 2004, 45(11):2000-2007.

DOI PMID

[70]
LI Z J, GUO X, DAWUTI G, et al. Antifungal activity of ellagic acid in vitro and in vivo[J]. Phytotherapy Research, 2015, 29(7):1019-1025.

DOI

[71]
阿米娜·阿不拉. 鞣花酸体外抗红色毛癣菌作用及机制研究[D]. 硕士学位论文. 乌鲁木齐: 新疆医科大学, 2017.

ABDULLA A. Study on the antifungal activity of ellagic acid against Trichophyton rubrum in vitro and its mechanism[D]. Master’s Thesis. Urumqi: Xinjiang Medical University, 2017. (in Chinese)

[72]
GUL H, GENG Z Y, HABIB G, et al. Effect of ellagic acid and mesocarp extract of Punica granatum on productive and reproductive performances of laying hens[J]. Tropical Animal Health and Production, 2022, 54(4):228.

DOI

[73]
IFLAZOGLU MUTLU S, SEVEN I, ARKALI G, et al. Ellagic acid plays an important role in enhancing productive performance and alleviating oxidative stress,apoptosis in laying quail exposed to lead toxicity[J]. Ecotoxicology and Environmental Safety, 2021, 208:111608.

DOI

[74]
XU Q Y, SHEN M K, HAN Y X, et al. Effects of ellagic acid supplementation on jejunal morphology,digestive enzyme activities,antioxidant capacity,and microbiota in mice[J]. Frontiers in Microbiology, 2021, 12:793576.

DOI

[75]
YANG T, LIU B F, WANG Y J, et al. Ellagic acid improves antioxidant capacity and intestinal barrier function of heat-stressed broilers via regulating gut microbiota[J]. Animals, 2022, 12(9):1180.

DOI

[76]
WANG F, CHEN J S, YIN Y X, et al. The effects of dietary ellagic acid supplementation on growth performance,immune response,antioxidant activity,digestive enzyme activities,and intestinal functions in yellow-feathered broilers[J]. Journal of Animal Science, 2022, 100(12):skac301.

DOI

[77]
CAMPBELL J M, CRENSHAW J D, POLO J. The biological stress of early weaned piglets[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):19.

DOI PMID

[78]
QI M, WANG N, XIAO Y X, et al. Ellagic acid ameliorates paraquat-induced liver injury associated with improved gut microbial profile[J]. Environmental Pollution, 2022, 293:118572.

DOI

[79]
QIN W X, XU B Y, CHEN Y W, et al. Dietary ellagic acid supplementation attenuates intestinal damage and oxidative stress by regulating gut microbiota in weanling piglets[J]. Animal Nutrition, 2022, 11:322-333.

DOI PMID

文章导航

/