综述

秸秆低温降解的研究进展

  • 韩宇杰 , 1, 2 ,
  • 常潇 1, 2 ,
  • 向海 1, 2 ,
  • 钟荣珍 , 1, *
展开
  • 1 中国科学院东北地理与农业生态研究所,吉林省草地畜牧重点实验室,长春 130102
  • 2 中国科学院大学,现代农业科学学院,北京 100049
*钟荣珍,研究员,博士生导师,E-mail:

韩宇杰(1999—),男,山西晋城人,硕士研究生,从事反刍动物营养与饲料研究。E-mail:

收稿日期: 2022-11-28

  网络出版日期: 2023-06-08

基金资助

中国科学院A类战略先导专项(XDA28020400)

吉林省与中国科学院科技合作高新技术产业化专项(2021SYHZ0033)

中国科学院青年创新促进会优秀会员人才专项(Y201949)

Research Progress of Straw Degradation at Low Temperature

  • HAN Yujie , 1, 2 ,
  • CHANG Xiao 1, 2 ,
  • XIANG Hai 1, 2 ,
  • ZHONG Rongzhen , 1, *
Expand
  • 1 Jilin Provincial Key Laboratory of Grassland Farming, Northeast Institute of Geography and Agroecology, Chinese Academy of Sciences, Changchun 130102, China
  • 2 University of Chinese Academy of Sciences, College of Advanced Agricultural Science, Beijing 100049, China
*professor, E-mail:

Received date: 2022-11-28

  Online published: 2023-06-08

摘要

低温会显著降低秸秆的降解和转化效率,其主要原因是低温下常规微生物活性下降。本文对几类秸秆耐低温降解微生物及其产生的冷活性酶进行归纳和总结,以期为后续筛选和开发适应低温的木质纤维素降解菌株提供参考,并促进低温下秸秆高效降解技术开发和寒区秸秆资源化利用率。

本文引用格式

韩宇杰 , 常潇 , 向海 , 钟荣珍 . 秸秆低温降解的研究进展[J]. 动物营养学报, 2023 , 35(6) : 3528 -3536 . DOI: 10.12418/CJAN2023.328

Abstract

Low temperature can significantly reduce the straw degradation and conversion efficiency, which is mainly due to the decline of conventional microbial activity under low temperature. In this paper, several kinds of low temperature resistant microorganisms and cold-active enzymes produced by them were summarized. It is expected to provide reference for the subsequent screening and development of lignocellulose degrading strains adapted to low temperature, and promote the development of efficient straw degradation technology under low temperature and the utilization of straw resources in cold regions.

中国是一个农业生产大国,农作物秸秆资源十分丰富。其中全国玉米、水稻和小麦三大类主要作物的秸秆产量达8亿多吨,总计占秸秆总产量的80%[1]。研究表明,中国的农作物秸秆以多种方式被利用,包括用于发电、饲料、肥料、原料和基础材料等。其中,秸秆还田是主要利用方法之一,不仅减少了现场焚烧造成的空气污染和健康危害,还提高了秸秆利用率和土壤有机质含量,保育土壤。秸秆含有丰富的有机质、钾、磷、氮和其他微量元素,是作物生长的理想肥料。我国华北(河北和内蒙古)和东北(辽宁、吉林、黑龙江)地区作为重要的粮食产区,每年产生的农作物秸秆超过2亿t,是中国主要的秸秆产区。但是由于其秋冬低温时期较长,秸秆降解效率低下,不仅会影响春季作物出苗,还会造成环境污染。因而,针对寒冷地区秸秆降解慢的问题,发展秸秆低温降解技术是有必要的。
低温条件下秸秆降解受阻除了其本身结构组成复杂外,主要还是因为低温下大部分微生物活性受到抑制[2]。秸秆低温降解技术的发展离不开耐低温降解菌的筛选和菌剂开发。然而,以往的大多数研究都集中在嗜热或中温微生物对秸秆的生物转化上,秸秆低温降解机理及其调控技术体系尚不完善。因此,来自不同寒冷栖息地的嗜冷/耐冷微生物因其巨大的生物转化潜力而备受关注。如果可以获得嗜冷木质纤维素降解菌,并深入了解其降解机制,则可以实现低温季节秸秆的继续发酵,这将大大提高低温区域秸秆的降解率和肥料化进程,促进全国秸秆资源化利用。

1 秸秆的物理结构和化学组成

秸秆通常是指农作物在收获籽实后的剩余部分。植物生物质经过漫长的时间演化形成复杂的物理结构和化学防御机制,以抵御来自微生物和动物对其结构糖的攻击,其中物理结构方面的因素有:1)秸秆的表皮组织,特别是角质层和表皮蜡,具有疏水性保护内部结构,微生物难以黏附;2)木质化程度,木质化程度越高,木质素(lignin)含量越多,木质素具有增强细胞壁坚固性和黏结纤维的作用,防止微生物降解;3)胞壁成分,如微纤维和基质聚合物,提高细胞壁结构异质性和复杂性,使酶难以入侵[3]
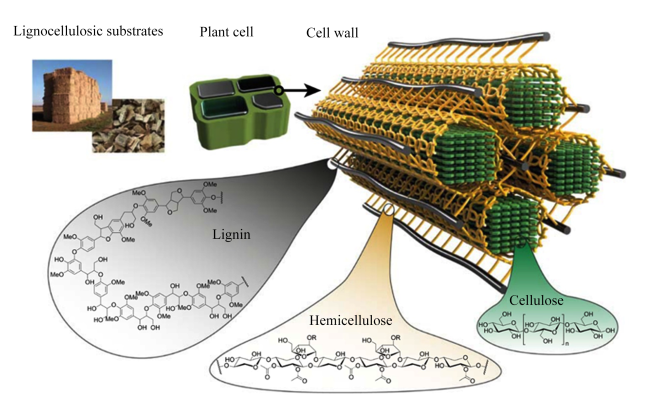
秸秆的化学成分主要是木质纤维素(lignocellulose),还包括一小部分果胶、氮化物和少量无机盐养分,其中木质纤维素是秸秆最重要的能源部分[4],它是纤维素(cellulose)、半纤维素(hemicellulose)以及酚类大分子木质素组成的结构复杂的紧密复合物(图1),其中纤维素占30%~60%,是由β-D-葡萄糖单元通过β-1,4-糖苷键组成,具有许多晶域(CD),重复单元是纤维二糖,长链纤维素聚合物通过氢键连接在一起,形成高度稳定的聚合物[5];半纤维素占14%~40%,是由己糖、戊糖等单糖和糖醛酸所构成的异质多聚体,与木质素以化学键相连,与纤维素以氢键相连;木质素占10%~35%,是一种异质芳香聚合物,由苯丙烷芳基-C3单元组成,通过各种醚键和C—C键连接在一起。它在其中形成与纤维素细丝紧密结合的基质,并与半纤维素共价连接。因单体不同可将木质素分为3种类型,即来自前体松柏醇的愈创木酚脂基(G)单元聚合而成的G-木质素、来自前体芥子醇的紫丁香基(S)单元聚合而成的S-木质素和来自前体对香豆醇的对羟基苯基(H)单元的聚合形成的H-木质素[6]。不同秸秆各成分含量不同,详见表1
图1 木质纤维素的组成和结构

Lignocellulosic substrates:木质纤维素基质;Plant cell:植物细胞;Cell wall:细胞壁;Hemicellulose:半纤维素;Cellulose:纤维素;Lignin:木质素。

Fig.1 Composition and structure of lignocellulose[5]

表1 不同秸秆木质纤维素生物质成分(干物质基础)

Table 1 Biomass composition of lignocellulose from different straws (DM basis)%

秸秆种类
Straw types
纤维素
Cellulose
半纤维素
Hemicellulose
木质素
Lignin
参考文献
References
小麦秸秆 Wheat straw 30 22 17 [7]
玉米秸秆 Corn straw 38 26 17 [8]
水稻秸秆 Rice straw 31 22 13 [9]

2 微生物降解秸秆机理

2.1 纤维素降解机理

在自然界中,纤维素的降解主要依赖由微生物产生的纤维素酶。纤维素酶已在各种细菌和真菌中得到广泛研究,并根据底物特异性分为3类:内切葡聚糖酶(EC 3.2.1.4)、外切葡聚糖酶(EC 3.2.1.91)和β-1,4-葡萄糖苷酶(EC 3.2.1.21)[10],它们是糖苷水解酶(GHs)的混合物,可将纤维素彻底降解为葡萄糖。内切葡聚糖酶(EG)作用于纤维素多糖链内的无定形区域,释放不同长度的寡糖,然后出现新的链端以供纤维素生物水解酶结合。较高的内切葡聚糖酶活性是木质纤维素高效降解和转化的先决条件。外切葡聚糖酶或纤维素生物水解酶(CBH)作用于还原和非还原纤维素多糖链或纤维糊精的末端,释放葡萄糖或纤维二糖[11]。此外,β-1,4-葡萄糖苷酶可以水解纤维二糖和葡萄糖残基并释放葡萄糖,这是纤维素转化为葡萄糖的限速步骤[12]

2.2 半纤维素降解机理

半纤维素解聚为更简单的成分需要大量酶的协同工作,半纤维素酶水解碳水化合物以及碳水化合物和非碳水化合物之间的糖苷键,或通过去除酚酯、甲基、乙酰基等帮助糖苷水解酶作用于半纤维素表面[13]。根据主链和侧链残基的结构,半纤维素酶可分为2类:解聚酶和辅助酶。半纤维素酶如内/外木聚糖酶、甘露聚糖酶和葡聚糖酶主要水解主链中的键;α-L-阿拉伯呋喃糖苷酶、阿魏酸酯酶和葡萄糖醛酸酯酶主要水解支链和侧链中的糖苷键和酯键[14]。其中,木聚糖酶是参与降解半纤维素的主要酶,能够分解β-1,4-糖苷键。木聚糖酶由内-1,4-β-D-木聚糖酶、β-D-木糖苷酶、对香豆素酯酶和阿魏酸酯酶组成,它们将木聚糖降解为木糖。类似地,内甘露聚糖酶水解β-1,4-糖苷键连接的甘露聚糖,产生甘露寡聚物,通过内-1,4-甘露糖苷酶进一步水解以产生甘露糖[11]

2.3 木质素降解机理

由于木质素结构的复杂性和不均匀性,木质素的降解比纤维素和半纤维素更困难。木质素酶主要包括细胞外过氧化物酶,如木质素过氧化物酶(Lip,EC1.11.1.14)、锰过氧化物酶(Mnp,EC 1.11.1.13)和细胞外酚氧化酶,如漆酶(Lac,EC 1.10.3.2)等[15]。漆酶解聚木质素并氧化多酚转化为醌,氧化形成的反应性醌最终在秸秆还田降解过程中形成复杂的产物,如腐殖质。木质素过氧化物酶的催化过程需要过氧化氢的协助,过氧化氢催化参与多步电子转移,然后形成中间自由基,如苯氧基自由基和藜芦醇自由基。这些中间自由基可以通过酚类化合物的聚合、侧链断裂、去甲基化、C—C断裂和芳香环打开的偶联反应,催化木质素中β-O-4醚键和Cα-Cβ键的断裂。锰过氧化物酶由于其高氧化还原潜力,表现出对酚型木质素的显著降解。酚型木质素被三价锰[Mn(Ⅲ)]氧化,然后去甲基化,烷基-苯基键断裂,Cα-Cβ键断裂[16]。木质素在木质素酶的作用下被氧化成不同的自由基,形成醌、芳香醛、醇和开环产物,从而实现木质素的生物降解。

2.4 低温对秸秆降解的影响

秸秆还田过程中,降解秸秆的微生物和酶几乎全部来源于土壤,低温会抑制土壤微生物的生长和酶的活性。Zhou等[17]提出,温度和土壤性质将改变在不同分解阶段参与分解秸秆的微生物群落;同时,秸秆的化学成分和微生物群落的组成是相互联系的,并且这种联系受温度变化的影响。低温会影响微生物的生理特性、生长速率、活性、群落结构等各方面,从而影响其降解能力。
对于不耐低温的微生物来说,低温会诱发其细胞的生理变化,对细胞的结构和功能产生负面影响。低温可以改变微生物细胞膜的结构和组成。细胞膜是由磷脂和蛋白质组成的流体胶体相,发挥生物功能。随着温度的降低,细胞会调节膜脂质组成,导致不饱和膜脂质增加,支链脂质减少,这些变化降低了细胞膜的流动性和渗透性。因此,低温导致微生物生物功能丧失。膜结构的变化也通过液体酶环境的变化影响蛋白质功能。例如,呼吸和运输蛋白质仅在液相中起作用。在低温下降低流动性会降低蛋白质的活性,导致底物运输损失,从而限制微生物营养供应并抑制微生物生长[18]。低温还会减缓蛋白质合成,导致酶活性降低[19]。低温对降解秸秆微生物的群落结构和物种丰富度也有显著影响,因为微生物在温度胁迫下的敏感性和抗性存在差异。班允赫等[20]研究对比了中温(25 ℃)与低温(10 ℃)下秸秆降解菌系群落多样性、群落结构和相对丰度,其结果表明温度对降解菌系组成有显著影响,当温度变化时,微生物群落结构也会产生较大变化。

3 秸秆低温降解微生物

3.1 嗜冷和耐冷微生物

目前,对秸秆降解微生物的研究主要集中在中高温菌株,不适合在低温地区应用。如果秸秆在施肥后没有及时分解,种子以及下一茬作物的出苗和生长将受到影响。因此,有必要分离出适合低温降解秸秆的微生物。
嗜冷和耐冷微生物广泛分布于自然界,因为80%的生物圈和90%的海洋环境的温度都低于5 ℃[21]。其中嗜冷微生物是指最适生长温度在15 ℃,生长温度不能超过20 ℃的微生物群体;耐冷微生物是指生长温度在5~20 ℃,最适生长温度20 ℃的微生物群体[22]。这些冷活性物种分布在不同的属中,如节杆菌属(Arthrobacter)、科尔韦尔氏菌属(Colwellia)、交替假单胞菌属(Pseudoalteromonas)、希瓦氏菌属(Shewanella)、鞘氨醇单胞菌属(Sphingomonas)、动性球菌属(Planococcus)、李斯特菌属(Listeria)等[23]
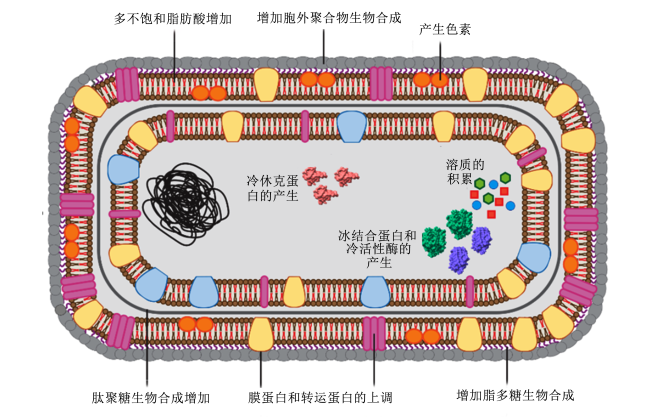
嗜冷/耐冷微生物进化出多种生理和分子策略来抵抗它们所遭受的低温压力。其中,最常见的是一种叫作细胞被膜的特殊成分,它可以抵消低温引起的膜流动性下降[24];产生相容性溶质(如渗透调节物质)和冰结合蛋白,以防止冰晶的形成和冰冻损伤[25];产生冷活性酶减少低温对代谢反应速率的负面影响[26]图2展示了细菌最常见的冷适应策略。
图2 细菌最常见的冷适应策略

Fig.2 Most common strategies of cold adaptation in bacteria[27]

除此之外,为了提高DNA/RNA二级结构的稳定性,在低温下嗜冷/耐冷微生物会降低转录和翻译酶活性,并减缓蛋白质折叠。微生物在冷适应过程中基因的差异性表达是明显的,这是嗜冷/耐冷微生物中的一种适应性功能[28]。来自嗜冷/耐冷微生物的冷活性酶通常具有以下特征:1)即使在低温下也具有高活性,弥补了化学反应速率的快速下降;2)由于在中高温下变性而导致的有限热稳定性;3)与中温微生物相比,酶活性曲线向低温偏移;4)冷活性酶的活性可以快速且经济地终止,从而节省能源并降低生产成本[29-31]。如今已经筛选出多种嗜冷木质纤维素降解微生物,包括嗜冷纤维素降解菌、嗜冷半纤维素降解菌、嗜冷木质素降解菌,它们可以产生不同的冷活性酶以降解复杂的化学键。

3.2 嗜冷纤维素降解微生物

纤维素是秸秆中含量最多的碳水化合物,是地球上主要的可再生能源。因此,它的周转在全球碳循环中起着重要作用。1996年首次报道了来自真菌嗜碱枝顶孢(Acremonium alcalophilum)的冷活性内切纤维素酶[32],其即使在0 ℃下也具有活性,这个发现开启了对冷活性纤维素酶的研究。随后,研究者们相继发现并鉴定了来自不同细菌和真菌属的各种产冷活性纤维素酶的嗜冷纤维素降解微生物,详见表2
表2 嗜冷纤维素降解微生物及其冷活性酶

Table 2 Psychrophilic cellulose degrading microorganisms and their cold active enzymes

嗜冷纤维素降解微生物
Psychrophilic cellulose degrading microorganisms
冷活性酶
Cold active enzymes
参考文献
References
黏红酵母 Rhodotorula glutinis 内切β-葡聚糖酶 [33]
浮游假交替单细胞菌 Pseudoalteromonas haloplanktis 纤维素酶CelG [34]
类芽孢杆菌BME-14 Paenibacillus sp. BME-14 内切葡聚糖酶Cel9P [35]
假单胞杆菌LKR-1 Pseudomonas sp. LKR-1 冷活性纤维素酶 [19]
鞘鞍醇杆菌FLX-7 Sphingobacterium sp. FLX-7 羧甲基纤维素酶 [36]
交替假单胞菌DY3 Pseudoalteromonas sp. DY3 内切葡聚糖酶CelX [37]
除了可直接分离培养的微生物外,未培养的微生物部分也具有巨大的生物催化潜力,宏基因组学技术的飞速发展为寻找冷活性纤维素酶提供了一种新方法,从各种环境中的未培养微生物中鉴定广泛的潜在酶。有研究者通过功能宏基因组学从寒冷沙漠中挖掘土壤样品,分离出了水解羧甲基纤维素(CMC)的冷适应内切酶CEL8M,当温度降至10 ℃时仍然保持显著活性[38],说明这种技术可以用于挖掘嗜冷木质纤维素降解酶。除宏基因组学技术外,基因克隆技术也起到了很大的作用,有研究者克隆了交替假单胞菌编码冷适应内切酶的基因CelA,并使其在中温菌大肠杆菌BL21中表达,发现其仍然保持低温酶特性[39]

3.3 嗜冷半纤维素降解微生物

因为半纤维素是一组共聚物的通称(包括阿拉伯糖、半乳糖、木糖等),复杂的结构决定了其降解需要多种菌和酶的协同作用。半纤维素根据主链中不同类型的糖残基可分为5类,每一类的降解都有不同的微生物[40],详见表3
表3 半纤维素不同糖残基及其可降解微生物

Table 3 Different sugar residues of hemicellulose and its degradable microorganisms[40]

半纤维素种类
Hemicellulose types
可降解微生物
Degradable microorganisms
聚-L-阿拉伯糖 Poly-L-arabinose 溶纤维丁酸弧菌、费新尼亚梭菌、黑曲霉菌等
聚-D-半乳糖 Poly-D-galactose 枯草芽孢杆菌、齐整小核菌、雪白根霉等
聚-D-甘露糖 Poly-D-mannose 枯草芽孢杆菌、黑曲霉菌、雪白根霉等
聚-(1-3)-β-D-木糖 Poly-(1-3)-β-D-xylose 海洋细菌、球毛壳菌等
聚-(1-4)-β-D-木糖 Poly-(1-4)-β-D-xylose 黑曲霉菌、绿色木霉等
木聚糖作为半纤维素的主要结构,是一组低分子质量多糖,与植物细胞壁中的纤维素和木质素密切相关[41]。因此,木聚糖的解聚是木质纤维素降解的关键步骤。寒冷地区的低温和干燥气候限制了它的快速生物降解,并成为秸秆资源利用的限制因素。迄今为止,文献报道的关于能够有效降解木聚糖的野生嗜冷细菌的信息很少。Zang等[42]从我国东北寒区土壤中分离出一株嗜冷细菌菌株,经鉴定为不动杆菌属HC4,该菌株可产生低温下具有活性的木聚糖酶,在15.4 ℃有最佳活性。Petrescu等[43]发现了一种嗜冷酵母,即阿德利亚隐球菌(Cryptococcus adeliae),其产生的冷适应木聚糖酶在0~20 ℃下比其他温度下表现出更低的活化能和更高的催化效率。但是嗜冷木聚糖降解菌对木聚糖的生物降解机制尚未得到详细研究。

3.4 嗜冷木质素降解微生物

由于木质素是一种复杂的异质聚合物,不仅为秸秆组织提供强度和抵抗力,还保护碳水化合物聚合物免受酶的消化,所以其降解是秸秆降解的关键一步,使纤维素和半纤维素得以释放[44]。寻找嗜冷木质素降解微生物是打破木质素屏障并促进木质纤维素降解的首要策略,有助于寒冷地区实施秸秆原位还田或离田堆腐后还田的培肥地力技术模式。
已被鉴定的木质素降解细菌主要分为3类,即放线菌、α-变形菌和γ-变形菌,木质素降解真菌以白腐真菌为主,还有褐腐真菌和软腐真菌。细菌可以作为木质素低温降解的有用工具,因为与真菌相比它们具有巨大的环境适应性、生物化学多功能性和产酶效率[45]。Jiang等[46]从土壤中分离出一株新的嗜冷木质素降解细菌,即节杆菌C2。在初始pH为6.74,温度为14.9 ℃,培养时间为6.87 d,接种量为2.24%条件下,木质素过氧化物酶和锰过氧化物酶的活性分别达到29.8、56.4 U/L,降解率达到40.1%,通过进一步的全基因组测序比较分析发现节杆菌C2含有与木质素降解和低温适应性相关的独特基因染料脱色过氧化物酶基因(dye-decolorizing peroxidase gene)[47]。韩月颖等[48]从长白山冻土中分离出一株木质素低温降解菌嗜麦芽窄食单胞菌(Stenotrophomonas maltophilia),在pH 8.0、培养温度15 ℃、培养时间3 d时产酶效果最佳,木质素过氧化物酶活性达到23.34 U/mL、漆酶活性达到9.37 U/mL、锰过氧化物酶活性达到50.89 U/mL。Cong等[49]分离出了真菌聚多曲霉(Aspergillus sydowii)MS-19,并证明其具有合成低温木质素过氧化物酶和锰过氧化物酶的能力,2种酶在0 ℃时仍然保持一定的活性。目前,尽管已经对木质素生物降解产物进行了一系列研究,但尚未阐明完整的降解途径,特别是低温下嗜冷细菌的木质素降解途径。

3.5 嗜冷秸秆降解菌群

在秸秆降解过程中并非单一微生物在起作用,而是多种不同微生物之间相互协调共同作用。有研究者以生物炭为载体,使用9株嗜冷纤维素、半纤维素和木质素降解菌制备了一种新型的嗜冷秸秆降解菌群(PSBC)。在PSBC作用下,玉米秸秆在10~15 ℃条件下发酵50 d后最大降解率达到59.3%[50]。Zheng等[2]从寒冷的多年生森林土壤中获得了一种新的嗜冷木质纤维素降解微生物群落LTF-27,该联合体主要由拟副杆菌属(Parabacteroides)、产碱菌属(Alcaligenes)、赖氨酸杆菌属(Lysinibacillus)、鞘氨杆菌属(Sphingobacterium)和梭状芽孢杆菌属(Clostridium)等组成,在15 ℃下发酵20 d,水稻秸秆的纤维素、半纤维素和木质素分别损失了其重量的71.7%、65.6%和12.5%。由此可见,多种微生物协同作用会极大地提高秸秆低温降解效率,但这些微生物的协同降解机制还有待深入研究。

4 小结与展望

关于低温降解秸秆的研究目前仍然处于起步阶段,虽然已经筛选出一些特定的嗜冷微生物,但仍然无法大规模使用,因此未来应该从以下几个方面加强研究:1)继续筛选具有冷适应特性的木质素纤维素降解微生物,从不同的生态环境中筛选并保存以丰富低温菌株库,同时充分利用宏基因组技术研究低温降解菌的生物起源。2)酶是生化反应过程的催化剂,在秸秆降解过程中,微生物代谢高度依赖于酶的功能。低温会降低酶活性,导致秸秆降解效果不佳。所以,未来的研究应该集中于低温条件下木质素降解酶表达的信号通路及其调控酶活性的变化和酶功能的调节,要涉及低温降解秸秆的关键群体。3)考虑到秸秆降解是一个微生物驱动的过程,探索低温下的微生物群落动力学是了解降解过程和微生物性能的必要条件。然而,很少有研究关注微生物群落响应低温变化的机制。因此,未来的研究应侧重于深入揭示低温条件下微生物群落结构变化与降解秸秆的内在机制。充分利用环境中多种微生物的协同作用,人为筛选构建能够高效、稳定降解秸秆的多菌株复合菌系是解决低温秸秆降解的关键。4)基因克隆是一项快速发展的技术,有助于提高我们对遗传系统结构和功能关系的理解,它为基因的开发和调控提供了极好的技术。许多工业上重要的酶现在都是由基因工程微生物生产的。对于酶的商业利用,需要以低成本实现更高的酶产量,因此要加强基因工程在冷活性酶方面的利用。
[1]
WANG B, SHEN X, CHEN S, et al. Distribution characteristics,resource utilization and popularizing demonstration of crop straw in southwest China:a comprehensive evaluation[J]. Ecological Indicators, 2018, 93:998-1004.

DOI

[2]
ZHENG G X, YIN T, LU Z X, et al. Degradation of rice straw at low temperature using a novel microbial consortium LTF-27 with efficient ability[J]. Bioresource Technology, 2020, 304:123064.

DOI

[3]
HIMMEL M E, DING S Y, JOHNSON D K, et al. Biomass recalcitrance:engineering plants and enzymes for biofuels production[J]. Science, 2007, 315(5813):804-807.

DOI

[4]
NGUYEN L N, NGUYEN A Q, JOHIR M A H, et al. Application of rumen and anaerobic sludge microbes for bio harvesting from lignocellulosic biomass[J]. Chemosphere, 2019, 228:702-708.

DOI PMID

[5]
BRETHAUER S, SHAHAB R L, STUDER M H. Impacts of biofilms on the conversion of cellulose[J]. Applied Microbiology and Biotechnology, 2020, 104(12):5201-5212.

DOI PMID

[6]
FAIX O. Classification of lignins from different botanical origins by FT-IR spectroscopy[J]. Holzforschung, 1991, 45(S1):21-28.

DOI

[7]
BALLESTEROS I, NEGRO M J, OLIVA J M, et al. Ethanol production from steam-explosion pretreated wheat straw[J]. Applied Biochemistry and Biotechnology, 2006, 129/132:496-508.

[8]
LI X, KIM T H, NGHIEM N P. Bioethanol production from corn stover using aqueous ammonia pretreatment and two-phase simultaneous saccharification and fermentation (TPSSF)[J]. Bioresource Technology, 2010, 101(15):5910-5916.

DOI PMID

[9]
CHEN W H, PEN B L, YU C T, et al. Pretreatment efficiency and structural characterization of rice straw by an integrated process of dilute-acid and steam explosion for bioethanol production[J]. Bioresource Technology, 2011, 102(3):2916-2924.

DOI

[10]
BHAT M K, BHAT S. Cellulose degrading enzymes and their potential industrial applications[J]. Biotechnology Advances, 1997, 15(3/4):583-620.

DOI

[11]
WU D, WEI Z M, MOHAMED T A, et al. Lignocellulose biomass bioconversion during composting:mechanism of action of lignocellulase,pretreatment methods and future perspectives[J]. Chemosphere, 2022, 286(Pt 1):131635.

DOI

[12]
DODDA S R, AICH A, SARKAR N, et al. Structural and functional insights of β-glucosidases identified from the genome of Aspergillus fumigatus[J]. Journal of Molecular Structure, 2018, 1156:105-114.

DOI

[13]
HOUFANI A A, ANDERS N, SPIESS A C, et al. Insights from enzymatic degradation of cellulose and hemicellulose to fermentable sugars-a review[J]. Biomass and Bioenergy, 2020, 134:105481.

DOI

[14]
HUANG J F, XIA T, LI G H, et al. Overproduction of native endo-β-1,4-glucanases leads to largely enhanced biomass saccharification and bioethanol production by specific modification of cellulose features in transgenic rice[J]. Biotechnology for Biofuels, 2019, 12(1):11.

DOI

[15]
JANUSZ G, PAWLIK A, SULEJ J, et al. Lignin degradation:microorganisms,enzymes involved,genomes analysis and evolution[J]. FEMS Microbiology Reviews, 2017, 41(6):941-962.

DOI

[16]
POLLEGIONI L, TONIN F, ROSINI E. Lignin-degrading enzymes[J]. FEBS Journal, 2015, 282(7):1190-1213.

DOI PMID

[17]
ZHOU G X, ZHANG J B, ZHANG C Z, et al. Effects of changes in straw chemical properties and alkaline soils on bacterial communities engaged in straw decomposition at different temperatures[J]. Scientific Reports, 2016, 6:22186.

DOI PMID

[18]
ZHOU H X, LI X, XU G R, et al. Overview of strategies for enhanced treatment of municipal/domestic wastewater at low temperature[J]. Science of the Total Environment, 2018, 643:225-237.

DOI

[19]
SUN S S, ZHANG Y T, LIU K R, et al. Insight into biodegradation of cellulose by psychrotrophic bacterium Pseudomonas sp. LKR-1 from the cold region of China:optimization of cold-active cellulase production and the associated degradation pathways[J]. Cellulose, 2020, 27(1):315-333.

DOI

[20]
班允赫, 李旭, 李新宇, 等. 利用高通量测序技术对水稻秸秆中、低温降解菌系的比较分析[J]. 微生物学杂志, 2020, 40(5):7-17.

BAN Y H, LI X, LI X Y, et al. Comparative analysis of rice straw-decomposing mesophilic and cryogenic microbial consortia using high-throughput sequencing technology[J]. Journal of Microbiology, 2020, 40(5):7-17. (in Chinese)

[21]
GOMES J, GOMES I, STEINER W. Thermolabile xylanase of the Antarctic yeast Cryptococcus adeliae:production and properties[J]. Extremophiles, 2000, 4(4):227-235.

DOI

[22]
MORITA R Y. Psychrophilic bacteria[J]. Bacteriological Reviews, 1975, 39(2):144-167.

DOI PMID

[23]
GUPTA S K, KATAKI S, CHATTERJEE S, et al. Cold adaptation in bacteria with special focus on cellulase production and its potential application[J]. Journal of Cleaner Production, 2020, 258:120351.

DOI

[24]
COLLINS T, MARGESIN R. Psychrophilic lifestyles:mechanisms of adaptation and biotechnological tools[J]. Applied Microbiology and Biotechnology, 2019, 103(7):2857-2871.

DOI

[25]
BAR DOLEV M, BRASLAVSKY I, DAVIES P L. Ice-binding proteins and their function[J]. Annual Review of Biochemistry, 2016, 85:515-542.

DOI PMID

[26]
SANTIAGO M, RAMÍREZ-SARMIENTO C A, ZAMORA R A, et al. Discovery,molecular mechanisms,and industrial applications of cold-active enzymes[J]. Frontiers in Microbiology, 2016, 7:1408.

[27]
MANGIAGALLI M, LOTTI M. Cold-active β-galactosidases:insight into cold adaption mechanisms and biotechnological exploitation[J]. Marine Drugs, 2021, 19(1):43.

DOI

[28]
DE MAAYER P, ANDERSON D, CARY C, et al. Some like it cold:understanding the survival strategies of psychrophiles[J]. EMBO Reports, 2014, 15(5):508-517.

DOI

[29]
VIOLOT S, HASER R, SONAN G, et al. Expression,purification,crystallization and preliminary X-ray crystallographic studies of a psychrophilic cellulase from Pseudoalteromonas haloplanktis[J]. Acta Crystallographica.Section D,Biological Crystallography, 2003, 59(Pt 7):1256-1258.

[30]
SHIVAJI S, CHATTOPADHYAY M K, RAY M K. Bacteria and yeasts of Schirmacher Oasis,Antarctica:taxonomy,biochemistry and molecular biology[J]. Proceedings of the NIPR Symposium on Polar Biology, 1994, 7:173-184.

[31]
STRUVAY C, FELLER G. Optimization to low temperature activity in psychrophilic enzymes[J]. International Journal of Molecular Sciences, 2012, 13(9):11643-11665.

DOI PMID

[32]
HAYASHI K, NIMURA Y, OHARA N, et al. Low-temperature-active cellulase produced by Acremonium alcalophilum JCM 7366[J]. Seibutsu-Kogaku Kaishi, 1996, 74(1):7-10.

[33]
OIKAWA T, TSUKAGAWA Y, SODA K. Endo-β-glucanase secreted by a psychrotrophic yeast:purification and characterization[J]. Bioscience,Biotechnology,and Biochemistry, 1998, 62(9):1751-1756.

DOI

[34]
GARSOUX G, LAMOTTE J, GERDAY C, et al. Kinetic and structural optimization to catalysis at low temperatures in a psychrophilic cellulase from the Antarctic bacterium Pseudoalteromonas haloplanktis[J]. Biochemical Journal, 2004, 384(Pt 2):247-253.

DOI

[35]
FU X Y, LIU P F, LIN L, et al. A novel endoglucanase (Cel9P) from a marine bacterium Paenibacillus sp. BME-14[J]. Applied Biochemistry and Biotechnology, 2010, 160(6):1627-1636.

DOI

[36]
LI D P, FENG L, LIU K R, et al. Optimization of cold-active CMCase production by psychrotrophic Sphingomonas sp. FLX-7 from the cold region of China[J]. Cellulose, 2016, 23(2):1335-1347.

DOI

[37]
YUAN X H, ZHANG P F, JIAO S M, et al. Overexpression and biochemical characterization of a recombinant psychrophilic endocellulase from Pseudoalteromonas sp. DY3[J]. International Journal of Biological Macromolecules, 2018, 116:100-105.

DOI PMID

[38]
BHAT A, RIYAZ-UL-HASSAN S, AHMAD N, et al. Isolation of cold-active,acidic endocellulase from Ladakh soil by functional metagenomics[J]. Extremophiles, 2013, 17(2):229-239.

DOI

[39]
YOU Y W, WANG T H. [Cloning and expression of endoglucanase of marine cold-adapted bacteria Pseudoalteromonas sp. MB-1][J]. Acta Microbiologica Sinica, 2005, 45(1):142-144.

[40]
CHEN H Z. Biotechnology of lignocellulose[M]. Dordrecht:Springer, 2014.

[41]
PRAKASH B, VIDYASAGAR M, JAYALAKSHMI S K, et al. Purification and some properties of low-molecular-weight extreme halophilic xylanase from Chromohalobacter sp. TPSV 101[J]. Journal of Molecular Catalysis B:Enzymatic, 2012, 74(3/4):192-198.

DOI

[42]
ZANG H L, DU X P, WANG J M, et al. Insight into cold-active xylanase production and xylan degradation pathways in psychrotrophic Acinetobacter sp. HC4 from the cold region of China[J]. Cellulose, 2020, 27(13):7575-7589.

DOI

[43]
PETRESCU I, LAMOTTE-BRASSEUR J, CHESSA J P, et al. Xylanase from the psychrophilic yeast Cryptococcus adeliae[J]. Extremophiles, 2000, 4(3):137-144.

DOI

[44]
SAWATDEENARUNAT C, SURENDRA K C, TAKARA D, et al. Anaerobic digestion of lignocellulosic biomass:challenges and opportunities[J]. Bioresource Technology, 2015, 178:178-186.

DOI

[45]
ATIWESH G, PARRISH C C, BANOUB J, et al. Lignin degradation by microorganisms:a review[J]. Biotechnology Progress, 2022, 38(2):e3226.

[46]
JIANG C, CHENG Y, ZANG H L, et al. Biodegradation of lignin and the associated degradation pathway by psychrotrophic Arthrobacter sp. C2 from the cold region of China[J]. Cellulose, 2020, 27(3):1423-1440.

DOI

[47]
JIANG C, YAN H H, SHEN X H, et al. Genome functional analysis of the psychrotrophic lignin-degrading bacterium Arthrobacter sp. C2 and the role of DyP in catalyzing lignin degradation[J]. Frontiers in Microbiology, 2022, 13:921549.

DOI

[48]
韩月颖, 张喜庆, 曲云鹏, 等. 一株低温木质素降解菌的筛选、产酶优化及酶学性质[J]. 微生物学通报, 2021, 48(10):3700-3713.

HAN Y Y, ZHANG X Q, QU Y P, et al. Screening, enzyme-production optimization and enzymatic properties of a low-temperature lignin-degrading bacteria[J]. Microbiology, 2021, 48(10):3700-3713. (in Chinese)

[49]
CONG B L, WANG N F, LIU S H, et al. Isolation,characterization and transcriptome analysis of a novel Antarctic Aspergillus sydowii strain MS-19 as a potential lignocellulosic enzyme source[J]. BMC Microbiology, 2017, 17(1):129.

DOI

[50]
CHENG Y, HUANG M Y, SHEN X H, et al. Enhanced cornstalk decomposition by a psychrotrophic bacterial consortium comprising cellulose,hemicellulose,and lignin degraders with biochar as a carrier for carbon neutrality[J]. Bioresource Technology, 2022, 344(Part B):126259.

文章导航

/