研究论文

植物提取物复合制剂缓解奶牛乳腺上皮细胞炎症反应的分子机制

  • 张腾龙 , 1 ,
  • 郭晨阳 2 ,
  • 宋洁 1 ,
  • 敖长金 , 1, * ,
  • 王丽芳 , 2, *
展开
  • 1 内蒙古农业大学动物科学学院,呼和浩特 010010
  • 2 内蒙古农牧业科学院,呼和浩特 010031
*敖长金,教授,博士生导师,E-mail: ;
王丽芳,研究员,E-mail:

张腾龙(1990—),男,内蒙古呼和浩特人,博士研究生,动物营养与饲料科学专业。E-mail:

收稿日期: 2022-11-25

  网络出版日期: 2023-06-08

基金资助

国家自然科学基金项目(31860663)

内蒙古自治区科技计划项目(2021GG0029)

内蒙古自然科学基金项目(2021LHMS03014)

内蒙古农牧业创新基金项目(2020CXJJM12)

奶牛疾病绿色防控技术应用示范(2022TG16)

Molecular Mechanisms of Plant Extracts Compound Preparation in Relieving Inflammatory Responses for Bovine Mammary Epithelial Cells

  • ZHANG Tenglong , 1 ,
  • GUO Chenyang 2 ,
  • SONG Jie 1 ,
  • AO Changjin , 1, * ,
  • WANG Lifang , 2, *
Expand
  • 1 College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010010, China
  • 2 Inner Mongolia Academy of Agricultural & Animal Husbandry Sciences, Hohhot 010031, China
*AO Changjin, professor, E-mail: ;
WANG Lifang, professor, E-mail:

Received date: 2022-11-25

  Online published: 2023-06-08

摘要

本试验旨在研究植物提取物复合制剂对脂多糖(LPS)诱导的奶牛乳腺上皮细胞(BMEC)炎症模型免疫、抗氧化功能和转录组的影响,以揭示植物提取物复合制剂缓解BMEC炎症反应的分子机制。试验选用第3代贴壁生长BMEC,随机分为5组,每组8个重复,每个重复1个培养孔。对照组BMEC不添加LPS和植物提取物复合制剂,采用基础培养基培养10 h;LPS组BMEC添加10 μg/mL LPS作用6 h后,采用基础培养基培养4 h;试验组BMEC加入10 μg/mL LPS作用6 h后,分别加入30(WELPS30组)、50(WELPS50组)及70 μg/mL(WELPS70组)的植物提取物复合制剂,采用基础培养基培养4 h。测定各组免疫及抗氧化相关指标,并选择LPS组和WELPS30组进行转录组测序及分析。结果表明:1)LPS组BMEC相对增殖率显著低于对照组(P<0.05),WELPS30组BMEC相对增殖率显著高于LPS组(P<0.05),且WELPS30组、WELPS50组和WELPS70组BMEC中肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)及白细胞介素-8(IL-8)含量显著低于LPS组(P<0.05)。2)LPS组BMEC中丙二醛(MDA)含量和诱导性一氧化氮合酶(iNOS)活性显著高于对照组(P<0.05),WELPS30组、WELPS50组和WELPS70组BMEC中MDA含量和iNOS活性显著低于LPS组(P<0.05),WELPS30组BMEC中总超氧化物歧化酶(T-SOD)、过氧化氢酶(CAT)和谷胱甘肽过氧化物酶(GSH-Px)活性及总抗氧化能力(T-AOC)显著高于LPS组(P<0.05)。3)转录组测序结果表明,共有369个差异表达基因。GO富集分析显示,差异表达基因主要参与调节白细胞介素-17(IL-17)生成、白细胞介导的细胞毒素作用、T细胞增殖等生物学过程。KEGG富集分析显示,差异表达基因主要集中在以NOD样受体(NLR)信号通路和IL-17信号通路为主的免疫相关信号通路。4)以介数中心性为指标进行网络分析,发现Toll样受体2(TLR2)、趋化因子10(CXCL10)和集落刺激因子2(CSF2)等10个基因在植物提取物复合制剂调控的差异表达免疫基因中起到关键连接性作用。由此可见,植物提取物复合制剂可以提高BMEC抗氧化功能,缓解BMEC炎症反应,其分子机制是植物提取物复合制剂通过调节IL-17信号通路和NLR信号通路缓解BMEC的炎症反应,TLR2、CXCL10和CSF2等10个基因在差异表达免疫基因中起到关键性的连接作用。

本文引用格式

张腾龙 , 郭晨阳 , 宋洁 , 敖长金 , 王丽芳 . 植物提取物复合制剂缓解奶牛乳腺上皮细胞炎症反应的分子机制[J]. 动物营养学报, 2023 , 35(6) : 3955 -3968 . DOI: 10.12418/CJAN2023.367

Abstract

The aim of this study was to investigate the effects of plant extracts compound preparation on the immune, antioxidant function and transcriptome of lipopolysaccharide (LPS)-induced bovine mammary epithelial cells (BMEC), and to reveal the molecular mechanism of plant extracts compound preparation in relieving inflammatory response for BMEC. The third-generation attachment cultured BMEC were randomly divided into 5 groups with 8 replicates per group and 1 culture pore per replicate. BMEC in control group were cultured in a basal medium without plant extracts compound preparation and LPS for 10 h; BMEC in LPS group were exposed in LPS with 10 μg/mL for 6 h, and then cultured in a basal medium for 4 h; BMEC in experimental groups were exposed in LPS with 10 μg/mL for 6 h, then supplemented with 30 (WELPS30 group), 50 (WELPS50 group) and 70 μg/mL (WELPS70 group) plant extracts compound preparation, respectively, and then cultured in basal mediums for 4 h. The immune and antioxidant related indexes were detected, LPS group and WELPS30 group were selected for transcriptome sequencing and analysis. The results showed as follows:1) the BMEC relative proliferation rate of LPS group was significantly lower than that of control group (P<0.05), the BMEC relative proliferation rate of WELPS30 group, WELPS50 group and WELPS70 group was significantly higher than that of LPS group (P<0.05), and the contents of tumor necrosis factor-α (TNF-α), interleukin-1β (IL-1β), interleukin-6 (IL-6) and interleukin-8 (IL-8) in BMEC of WELPS30 group, WELPS50 group and WELPS70 group were significantly lower than those of LPS group (P<0.05). 2) The content of malondialdehyde (MDA) and activity of inducible nitric oxide synthase (iNOS) in BMEC of LPS group were significantly higher than those in control group (P<0.05), the content of MDA and activity of iNOS in BMEC of WELPS30 group, WELPS50 group and WELPS70 group were significantly lower than those of LPS group (P<0.05), the activities of total superoxide dismutase (T-SOD), catalase (CAT) and glutathione peroxidase (GSH-Px) and total antioxidant capacity (T-AOC) in BMEC of WELPS30 group were significantly higher than those of LPS group (P<0.05). 3) A total of 369 differentially expressed genes were identified by transcriptome sequencing. The GO enrichment analysis showed that the differentially expressed genes were mainly involved in the regulation of interleukin-17 (IL-17) production, leukocyte mediated cytotoxic effect, T cell proliferation and other biological processes. The KEGG enrichment analysis showed that the differentially expressed genes were mainly expressed in immune-related signaling pathways, mainly NOD-like receptor (NLR) signaling pathway and IL-17 signaling pathway. 4) The network analysis based on betweenness centrality revealed that 10 genes such as Toll-like receptor 2 (TLR2), chemotactic factor 10 (CXCL10) and colony stimulating factor 2 (CSF2) played a key connecting role in the differentially expressed immune genes regulated by plant extracts compound preparation. In conclusion, the plant extracts compound preparation can improve the antioxidant function and alleviate the inflammatory response of BMEC, the molecular mechanism is plant extracts compound preparation can regulate the IL-17 signaling pathway and NLR signaling pathway to alleviate the inflammatory response of BMEC, and the 10 genes including TLR2, CXCL10 and CSF2 etc play key connection roles in the differential expression of immune genes.

乳房炎是世界范围内奶牛养殖业中成本最高的疾病之一,其本质是乳房内部被细菌感染并产生炎症反应[1]。尽管有许多细菌会引起乳房炎,但只有少数细菌是普遍存在于奶牛养殖场中。其中,革兰氏阴性菌大肠杆菌不仅是广泛存在于环境中的致病菌,并且是在泌乳早期临床乳房炎奶牛中发现的最普遍的病原体[2],同时在日常养殖过程中很容易传播于牛群中,最终导致慢性或终身疾病。奶牛乳腺上皮细胞(BMEC)是抵御乳房感染的第1道防线,细菌的毒素、酶和细胞壁成分对BMEC的功能有直接影响,产生细胞因子等各种炎症介质[3-4]。脂多糖(LPS)是革兰氏阴性菌细胞壁的主要成分,能够刺激BMEC产生白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)和肿瘤坏死因子-α(TNF-α)等促炎性细胞因子[5-7],从而诱发乳房炎,是目前国际上公认的研究奶牛乳房炎的主要病理模型[8]
使用抗生素进行奶牛乳房炎的防治是牧场生产中最普遍的方法,但是由此导致的病原体耐药性和乳中抗生素的残留问题也越来越严重。有研究表明,植物提取物可以治疗奶牛乳房炎[9-10],且具有长期使用不会诱发耐药性的优势[11-12],已成为最具应用潜力的抗生素替代品。Lai等[13]研究发现,槐蓝属植物中提取的靛玉红能够通过抑制Toll样受体4(TLR4)和下游核转录因子-κB(NF-κB)及丝裂原活化蛋白激酶(MAPK)途径的炎症信号,改善由LPS诱导的小鼠乳房炎。Lee等[14]研究发现,蒲公英水提取物能够抑制LPS刺激的牛外周血单核细胞中IL-1βIL-6、IL-8和TNF-α等促炎性细胞因子的基因表达量,并抑制一氧化氮(NO)的产生。
金银花具有抗炎解热、抗衰老、抗氧化等生物功能[15];蒲公英有广谱抗菌作用[16];连翘能够抑制大肠杆菌、葡萄球菌及链球菌等病原微生物的生长[17];益母草具有提高动物繁殖性能的作用[18]。因此,本试验选择金银花、蒲公英、连翘和益母草的粗提取物制成植物提取物复合制剂,作用于LPS诱导的BMEC,研究其对炎症BMEC的影响和机理,为植物提取物复合制剂在乳房炎奶牛上的应用提供数据支持。

1 材料与方法

1.1 BMEC的培养

在奶牛屠宰后采集整个乳腺并迅速转移至实验室进行后续试验操作。使用无菌手术剪、手术刀及镊子进行样品的采集。将采集的乳腺组织分割为约1 cm3的组织块,要求腺泡丰富、导管和脂肪较少。每次使用约20个乳腺组织块进行后续试验。将采集的乳腺组织用无菌磷酸盐缓冲液(PBS)(双抗浓度为300 U/mL)冲洗至无明显乳汁溢出,然后放入含75%酒精的烧杯内清洗约30 s,再依次在无菌PBS(双抗浓度为300 U/mL)中清洗3次。使用无菌眼科剪去除酒精浸泡过的外层组织、脂肪、结缔组织和残留管腔结构。将符合上述要求的乳腺组织剪碎为直径1~2 mm的颗粒并移入5 mL刻度离心管内,向离心管内加入等体积0.5%的Ⅱ型胶原酶溶液,置于37 ℃、5% CO2饱和的培养箱中,消化1.0~1.5 h得到组织细胞混合液。将消化1.0~1.5 h的组织细胞混合液用100目孔径的无菌尼龙滤网过滤,将细胞滤液转移至10 mL锥底刻度离心管中,于1 300 r/min离心5 min,弃去上清液。然后向离心管内加入生长培养基悬浮细胞,将细胞和生长培养基的混合液接种于25 cm2一次性细胞培养瓶中,于37 ℃、5% CO2饱和的培养箱中进行培养。待原代细胞生长且贴壁率达到80%~90%时,进行细胞纯化及传代。将分离纯化后的BMEC鉴定后,连续培养到第3代,将其分别接种于试验设计要求的细胞培养器皿中,加入完全培养基,37 ℃、5% CO2条件下培养,待细胞贴壁率达到80%~90%时,弃去旧培养基,加入不含胎牛血清培养基培养24 h后,按试验设计进行后续试验。

1.2 试验设计

1.2.1 植物提取物复合制剂添加量的筛选

植物提取物复合制剂为金银花、益母草、连翘、蒲公英的植物水提取物按照干物质重量比1∶1∶1∶1混合制成,各植物提取物委托南京泽朗生物科技有限公司进行制备,提取工艺条件为:10倍水,60 ℃,提取2.5 h,然后8倍水,60 ℃,提取2 h。4种植物提取物的活性成分含量见表1,委托武汉迈特维尔生物科技有限公司采用广泛靶向代谢组学方法进行测定。
表1 4种植物提取物的活性成分含量

Table 1 Active ingredient contents of 4 plant extracts%

项目
Items
金银花
Honeysuckle
连翘
Forsythia
蒲公英
Dandelion
益母草
Leonurus
黄酮 Flavonoids 39.51 14.80 27.16 25.48
酚酸 Phenolic acids 17.79 21.95 22.03 17.25
核苷酸 Nucleotides 10.04 11.06 8.43
有机酸 Organic acids 6.27 10.54 10.11 11.74
脂质 Lipids 5.95 17.86 9.13 18.68
木质素和香豆素 Lignin and coumarin 20.08
其他 Others 20.44 14.77 20.51 18.42
合计 Total 100.00 100.00 100.00 100.00
将贴壁生长的第3代BMEC随机分为7组,每组6个重复,每个重复1个培养孔。对照组采用基础培养基,不添加植物提取物复合制剂,不同水平植物提取物复合制剂添加量分别为10、30、50、70、100和300 μg/mL,培养时间为2、4、6、8、12和24 h,以确定植物提取物复合制剂的适宜添加量。

1.2.2 植物提取物复合制剂对炎症BMEC的抑制作用

LPS(O111∶B4,苯酚纯化,货号:L4391)购自美国Sigma公司。以LPS诱导BMEC炎症损伤,建立炎症损伤模型,LPS作用时间及作用浓度为课题组前期试验结果确定(添加剂量:10 μg/mL,作用时间:6 h)。将贴壁生长的第3代BMEC随机分为5组,每组8个重复,每个重复1个培养孔。对照组(CON组)采用基础培养基,不添加LPS和植物提取物复合制剂,培养10 h;LPS组加入10 μg/mL的LPS作用6 h后,采用基础培养基培养4 h;植物提取物复合制剂组在加入10 μg/mL的LPS培养6 h后,再分别加入30(WELPS30组)、50(WELPS50组)和70 μg/mL(WELPS70组)的植物提取物复合制剂,采用基础培养基培养4 h。

1.3 测定指标与方法

1.3.1 相对增殖率

BMEC的相对增殖率采用CCK-8法测定。将第3代BMEC悬液接种于96孔板中,按试验设计培养后,向各培养孔中加入20 μL的CCK-8溶液,培养1 h后,使用全自动酶标仪检测各孔450 nm吸光值(OD450 nm),相对增殖率计算公式如下:
相对增殖率(%)=(试验组OD450 nm/对照组OD450 nm)×100。

1.3.2 炎症因子及抗氧化指标

将试验中的细胞培养液收集于1.5 mL Eppendorf管中,1 500 r/min离心10 min,收集上清液用于炎症因子及抗氧化指标的测定。一氧化氮(NO)含量采用Griess法测定,试剂盒购自美国Progema Corporation公司。诱导性一氧化氮合酶(iNOS)、总超氧化物歧化酶(T-SOD)、过氧化氢酶(CAT)活性和总抗氧化能力(T-AOC)及TNF-α、IL-1β、IL-6、IL-8、白细胞介素-10(IL-10)含量均采用酶联免疫吸附法测定。谷胱甘肽过氧化物酶(GSH-Px)活性采用二硫代二硝基甲苯酸法测定。丙二醛(MDA)含量采用硫代巴比妥酸法测定。上述指标所用试剂盒均购自南京建成生物工程研究所。

1.3.3 转录组测序

细胞培养液收集完成后,用预冷的PBS溶液清洗2次细胞,加入胰蛋白酶消化细胞至部分细胞呈球状,用培养基终止消化后,加入PBS吹打,悬浮细胞,1 800 r/min离心,弃去上清液,加入细胞保存液,-80 ℃保存,选择LPS组和WELPS30组委托上海美吉生物医药科技有限公司进行RNA的提取和测序。
采用TRIzol(Invitrogen Corporation公司,美国)法提取BMEC中的总RNA,并使用DNase Ⅰ(TaKaRa Biotechnology Corporation公司,日本)去除基因组DNA。分别采用2100 Bioanalyser(Agilent Technologies Incorporated公司,美国)、ND-2000(NanoDrop Technologies公司,美国)检测RNA样品的质量,以保证使用合格的样品进行转录组测序。
RNA文库的建立采用TruSeqTM RNA Sample Preparation Kit试剂盒(Illumina公司,美国)。首先利用带有Oligo(dT)的磁珠从1 μg总RNA中富集有poly-A尾的mRNA。再加入Fragmentation Buffer,将mRNA随机断裂成200 bp左右的小片段。接着采用SuperScript Double-Stranded cDNA Synthesis Kit试剂盒(Invitrogen Corporation公司,美国),加入六碱基随机引物(Illumina公司,美国),以mRNA为模板反转合成一链cDNA,随后进行二链合成,形成稳定的双链结构。双链的cDNA结构为黏性末端,加入End Repair Mix将其补成平末端,随后在3’末端加上1个A碱基,用于连接Y字形的接头。cDNA经过PCR富集(Sample Preparation Kit试剂盒中自带)后,DNA Clean Beads筛选200~300 bp的条带。使用Picogreen荧光染料(Invitrogen Corporation公司,美国)经TBS380微型荧光计定量后,文库使用Illumina HiSeq Xten/NovaSeq 6000测序平台进行高通量测序,测序读长为双端测序(paired-end, PE)150。

1.4 数据处理与分析

试验数据采用Excel 365进行整理分析,并使用Prism 8.0统计制图软件进行标准曲线的绘制,使用SPSS 26.0统计软件中的ANOVA程序进行单因素方差分析。P<0.05表示差异显著,P>0.05表示差异不显著。
委托上海美吉生物医药科技有限公司通过Illumina平台进行高通量测序。应用DESeq2软件进行差异表达基因的筛选,多重验证采用Benjamini-Hochberg(BH)方法,显著性水平设置为校正后的P值(P-adjust)<0.05,差异倍数(fold change,FC)设置为1.5以上。得到差异表达基因后对差异表达基因做GO功能分析和KEGG信号通路分析。
使用STRING数据库[19]搜索已知和预测的蛋白质相互作用的基因产物,置信评分临界值设置为0.7。利用Cytoscape 3.9.1软件进行互作网络图的绘制,从主网络集群中分离出的单节点、双节点和三节点被移除,并进行网络分析。节点颜色和大小分别基于差异基因表达量的上调、下调和介数中心性(betweenness centrality,BC)。

2 结果

2.1 植物提取物复合制剂对BMEC相对增殖率的影响

表2可以看出,当植物提取物复合制剂的添加量大于100 μg/mL时,会对BMEC造成损伤;当培养时间超过4 h时,大部分添加量的植物提取物复合制剂会对BMEC造成损伤。因此,根据相对增殖率最大值可以得出,植物提取物复合制剂的适宜添加量为30~70 μg/mL,适宜培养时间为4 h。
表2 植物提取物复合制剂对BMEC相对增殖率的影响

Table 2 Effects of plant extracts compound preparation on relative proliferation rate of BMEC%

时间
Time/h
植物提取物复合制剂添加量
Plant extracts compound preparation supplemental level/(μg/mL)
0 10 30 50 70 100 300
2 100 97.51 94.22 97.21 96.57 93.99 89.08
4 100 103.99 111.21 133.37 119.70 106.34 97.01
6 100 113.93 93.57 110.30 107.29 97.53 96.95
8 100 104.16 97.55 91.55 98.32b 95.63 93.50
12 100 98.13 96.28 94.16 92.73 97.46 95.20
24 100 96.25 91.05 95.83 93.74 93.59 93.64

2.2 植物提取物复合制剂对LPS诱导损伤的BMEC相对增殖率、抗氧化和炎症因子指标的影响

表3可以看出,与对照组相比,LPS组BMEC相对增殖率显著降低(P<0.05);BMEC中炎症因子指标TNF-α、IL-1β、IL-6、IL-8和IL-10含量显著上升(P<0.05);BMEC中抗氧化指标T-SOD、CAT、GSH-Px活性和T-AOC显著下降(P<0.05),MDA含量和iNOS活性显著上升(P<0.05),NO含量无显著变化(P>0.05)。
表3 植物提取物复合制剂对LPS诱导损伤的BMEC相对增殖率、抗氧化和炎症因子指标的影响

Table 3 Effects of plant extracts compound preparation on relative proliferation rate, antioxidant and inflammatory factor indices of BMEC with LPS-induced damage

项目
Items
组别 Groups 均值
标准误
SEM
P
P-value
CON LPS WELPS30 WELPS50 WELPS70
相对增殖率
Relative proliferation rate/%
100.00c 78.34a 87.93b 85.99ab 82.08a 1.96 0.002
肿瘤坏死因子-α TNF-α/(pg/mL) 115.55a 144.27d 127.97b 133.29c 136.50c 1.61 0.001
细胞白介素-1β IL-1β/(pg/mL) 76.55a 108.74e 87.97b 95.41c 102.43d 1.92 0.001
细胞白介素-6 IL-6/(pg/mL) 142.84a 179.15d 150.25b 160.26c 62.61c 2.08 0.001
细胞白介素-8 IL-8/(pg/mL) 48.10a 55.74c 49.96ab 51.74b 52.10b 0.54 0.001
细胞白介素-10 IL-10/(pg/mL) 14.27a 15.44b 15.63b 15.16b 15.22b 0.11 0.001
总超氧化物歧化酶
T-SOD/(ng/mL)
19.94d 16.36a 18.88c 17.27ab 17.91b 0.24 0.001
总抗氧化能力 T-AOC/(U/mL) 2.36c 1.38a 2.02b 1.50a 1.43a 0.07 0.001
过氧化氢酶 CAT/(U/mL) 37.59d 30.02a 36.09cd 35.24b 33.06c 0.48 0.001
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
195.58e 147.38a 190.36d 161.66b 182.13c 2.99 0.001
丙二醛 MDA/(nmol/mL) 2.29c 2.78d 2.33c 2.01a 2.20b 0.04 0.001
一氧化氮 NO/(μmol/L) 316.27 472.07 279.61 483.06 372.40 38.99 0.404
诱导型一氧化氮合酶
iNOS/(U/mL)
2.59a 3.91c 2.79b 2.68a 2.81b 0.08 0.001

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

与LPS组相比,WELPS30组BMEC相对增殖率显著上升(P<0.05);WELPS30组、WELPS50组和WELPS70组BMEC中TNF-α、IL-1β、IL-6和IL-8含量显著下降(P<0.05),IL-10含量无显著变化(P>0.05);WELPS30组BMEC中T-SOD活性和T-AOC显著上升(P<0.05);WELPS30组、WELPS50组和WELPS70组BMEC中CAT和GSH-Px活性显著上升(P<0.05),MDA含量和iNOS活性显著下降(P<0.05),NO含量无显著变化(P>0.05)。

2.3 测序结果统计

总共对16个样本进行测序,总读数从4 313万个到5 833万个不等,中位数为5 241万个。在LPS组中,94.98%~95.62%的总读数能够定位到参考序列;在WELPS70组中,94.69%~95.29%的总读数能够定位到参考序列,说明所选参考序列能够满足后续分析需求。

2.4 差异表达基因

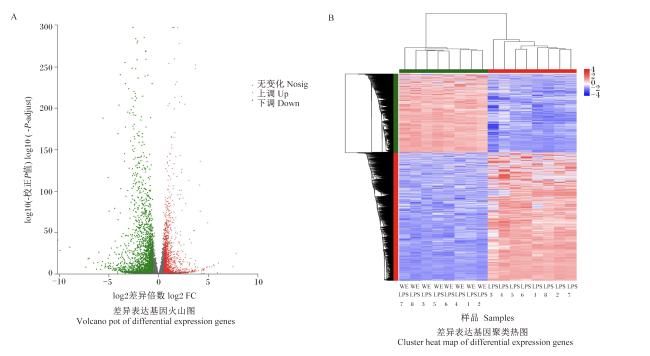
使用DESeq2软件并进行表达量差异统计,统计LPS组与WELPS70组之间的差异表达基因。设置FC为1.5,多重检验校正方法采用BH方法,显著性水平为P-adjust<0.05。在LPS组与WELPS70组之间总共检测到3 573个差异表达基因,其中上调基因1 359个,下调基因2 214个(图1-A)。对差异表达基因进行聚类分析,绘制聚类热图(图2-B),图中颜色越红代表基因表达量越高,颜色越蓝代表基因的表达量越低。从图中可以看出,组内样品基因的表达量基本趋于一致,说明生物学重复性良好,组间样品则存在差异基因表达变化。
图1 差异表达基因分析

Fig.1 Analysis of differential expression genes

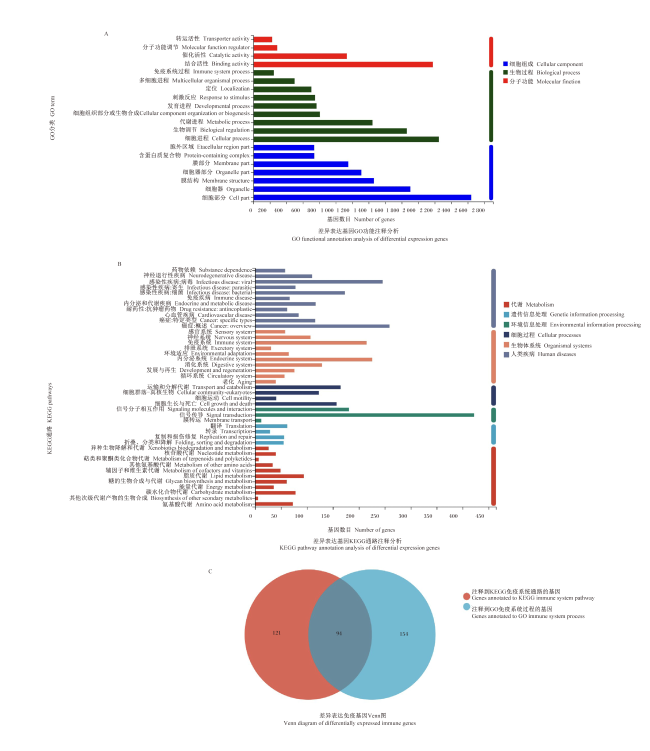
图2 差异表达基因功能注释分析

Fig.2 Functional annotation analysis of differential expression genes

对差异表达基因进行GO功能分析(图2-A)和KEGG信号通路分析(图2-B)。在GO注释分析中注释到免疫系统过程(immune system process)的基因有248个,在KEGG注释分析中注释到21个免疫系统通路的基因有215个。总共有369个基因注释在GO数据库和KEGG数据库的免疫相关基因(图2-C),其中94个基因在2个数据库中均注释为免疫相关基因,154个基因仅在GO数据库中注释为免疫相关基因,121个基因仅在KEGG数据库中注释为免疫相关基因。

2.5 差异表达免疫基因生物功能分析

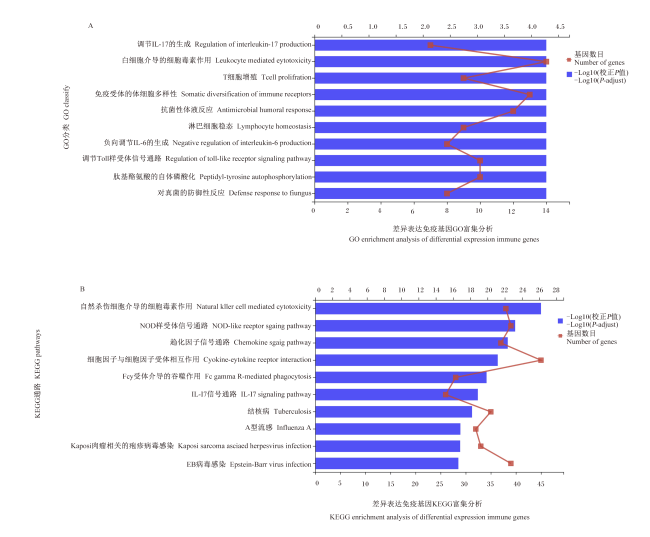
将上述369个基因作为差异表达免疫基因,进行GO富集和KEGG富集分析。GO富集分析发现(图3-A),差异表达免疫基因主要富集在调节白细胞介素-17(IL-17)生成、白细胞介导的细胞毒素作用、T细胞增殖等生物学过程。KEGG通路富集分析发现(图3-B),差异表达免疫基因主要富集在自然杀伤细胞介导的细胞毒素作用、NOD样受体(NLR)信号通路、趋化因子信号通路和IL-17信号通路等生物学过程。
图3 差异表达免疫基因富集分析

Fig.3 Enrichment analysis of differential expression immune genes

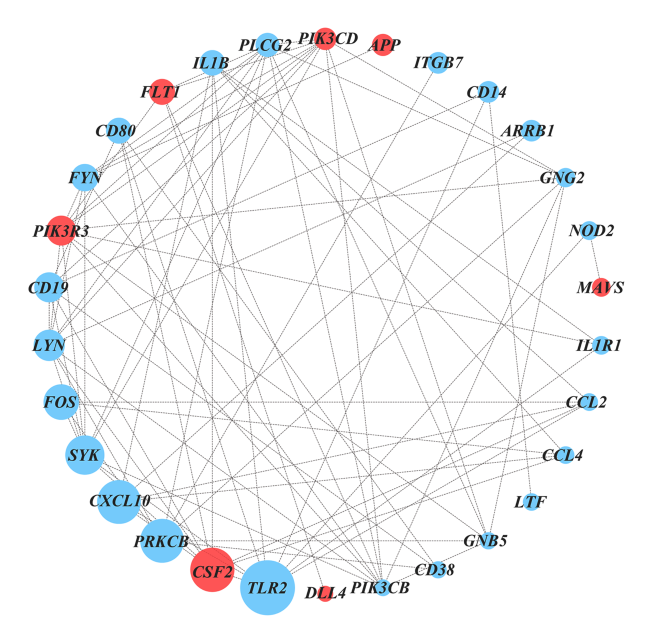
将差异表达免疫基因所对应的蛋白质产物形成互作网络图(图4),以确定差异表达免疫基因之间的相互作用关系。Toll样受体2(TLR2)、趋化因子10(CXCL10)和集落刺激因子2(CSF2)等10个基因的BC值最高,表明它们在与其他基因的连接中起到关键作用(表4)。TLR2、CXCL10和蛋白激酶Cβ(PRKCB)等8个基因的表达量显著下调(P-adjust<0.05),CSF2和磷脂酰肌醇-3激酶调节亚基3(PIK3R3)的表达量显著上调(P-adjust<0.05)。
图4 差异表达免疫基因功能互作网络图

TLR2:Toll样受体2 Toll like receptor 2;CSF2:集落刺激因子2 colony stimulating factor 2;PRKCB:蛋白激酶Cβ protein kinase C beta;CXCL10:趋化因子10 chemotactic factor 10;SYK:脾酪氨酸激酶 spleen associated tyrosine kinase;FOS:原癌基因fos proto-oncogene fos;LYN:原癌基因lyn proto-oncogene lyn;CD19:CD19分子 CD19 molecule;PIK3R3:磷脂酰肌醇-3激酶调节亚基3 phosphoinositide-3-kinase regulatory subunit 3;FYN:酪氨酸-蛋白激酶Fyn tyrosine-protein kinase Fyn;CD80:CD80分子 CD80 molecule;FLT1:血管内皮生长因子受体1前体 vascular endothelial growth factor receptor 1 precursor;IL1B:白细胞介素-1β interleukin-1β;PLCG2:1-磷脂酰肌醇4,5-二磷酸磷酸酯酶γ-2 1-phosphatidylinositol 4,5-bisphosphate phosphodiesterase gamma-2;PIK3CD:磷脂酰肌醇-4,5-二磷酸3-激酶,催化亚单位δ phosphatidylinositol-4,5-bisphosphate 3-kinase, catalytic subunit delta;APP:淀粉样β-a4蛋白前体 amloid-beta a4 protein precursor;ITGB7:牛整合素β7 bos taurus integrin beta7;CD14:CD14分子 CD14 molecule;ARRB1:β-限制素-1 beta-arrestin-1;CNG2:环状核苷酸门控嗅觉通道 cyclic nucleotide-gated olfactory channel;NOD2:含核苷酸结合的寡聚结构域蛋白2 nucleotide-binding oligomerization domain-containing protein 2;MAVS:线粒体抗病毒信号蛋白 mitochondrial antiviral-signaling protein;IL1R1:白细胞介素-1受体1型前体 interleukin-1 receptor type 1 precursor;CCL2:C-C样趋化因子2 C-C motif chemokine 2;CCL4:C-C样趋化因子4 C-C motif chemokine 4;LTF:乳铁蛋白前体 lactotransferrin precursor;GNB5:G蛋白亚单位β5 G protein subunit beta 5;CD38:牛CD38分子 bos taurus CD38 molecule;PIK3CB:磷脂酰肌醇-4,5-二磷酸酯3-激酶,催化亚单位β phosphatidylinositol-4,5-bisphosphate 3-kinase, catalytic subunit beta;DLL4:Delta样配体4 Delta-like ligand 4。

网络图中包含179个节点和543条边,每个节点代表1个基因所对应的蛋白质,每条边代表2个蛋白质之间的相互作用。节点大小代表BC值。节点的颜色对应表达量,蓝色为表达量下调,红色为表达量上调。图中仅展示BC值最高的前30个节点及相关的边。

Fig.4 Main network cluster of differential expression immune genes

The network graph contains 179 nodes and 543 edges, each node represents the protein corresponding by a gene, and each edge represents the interaction between two proteins. Node size represents BC values. The color of the node corresponds to the expression level, blue means the expression level is down-regulated, and red means the expression level is up-regulated. Only the top 30 nodes with highest BC values and associated edges are shown in the figure.

表4 关键免疫基因

Table 4 Key immune genes

基因
Genes
调节
Regulation
log2FC值
log2FC value
校正后的P
P-adjust
原癌基因lyn LYN 下调 -1.006 <0.001
原癌基因fos FOS 下调 -0.670 <0.001
磷脂酰肌醇-3激酶调节亚基3 PIK3R3 上调 0.995 <0.001
Toll样受体2 TLR2 下调 -0.710 <0.001
脾酪氨酸激酶 SYK 下调 -0.712 <0.001
趋化因子10 CXCL10 下调 -1.720 <0.001
集落刺激因子2 CSF2 上调 0.786 <0.001
蛋白激酶Cβ PRKCB 下调 -1.060 0.003
CD19分子 CD19 下调 -2.874 0.005
原癌基因fyn FYN 下调 -2.556 0.006

3 讨论

3.1 植物提取物复合制剂对BMEC炎症因子的影响

BMEC是抵御外部感染的第1道防线,分泌的细胞因子作为化学信使能够在细胞之间传递信息并调节机体的免疫稳态和炎症反应[20]。TNF-α、IL-1β、IL-6和IL-8被认为是促炎性细胞因子,在炎症BMEC中的含量显著提高[21-22]。因此,减少促炎性细胞因子的产生可能是治疗乳房炎的有效方法。本试验中观测到,LPS诱导的BMEC中,TNF-α、IL-1β、IL-6和IL-8含量均显著提高,这与前人的研究结果[21-22]一致;同时,植物提取物复合制剂组促炎性细胞因子含量低于LPS组,说明植物提取物复合制剂对LPS诱导的BMEC炎症反应有积极的调节作用。IL-10是最广为人知的抗炎性细胞因子,能够抑制TNF-α、IL-1β和IL-8等细胞因子的产生,从而调节机体的炎症反应[23]。本试验中,LPS组IL-10含量显著高于对照组,与Zhuang等[24]关于大肠杆菌引起BMEC炎症反应的研究结果相一致,IL-10的释放能够防止BMCE的过度炎症反应,从而维持乳腺健康,但增加IL-10含量并不能完全抑制促炎性细胞因子的产生。同时,本试验中,植物提取物复合制剂组与LPS组IL-10含量差异不显著,推测植物提取物复合制剂并不是通过调节IL-10的释放来调节BMEC的炎症反应。

3.2 植物提取物复合制剂对BMEC抗氧化功能的影响

氧化应激是炎症过程中的伴随现象[25],是病原微生物所引起的免疫反应和活性氧生成共同作用的结果。在细胞中,MDA是脂质过氧化的产物之一,其含量可以反映氧化应激水平[26],同时,NO含量和iNOS活性能够反映奶牛乳腺的氧化损伤水平[27]。本试验中,LPS组MDA含量和iNOS活性显著高于对照组,植物提取物复合制剂组MDA含量和iNOS活性显著低于LPS组;LPS组NO含量高于对照组,植物提取物复合制剂组NO含量低于LPS组,但差异不显著,说明LPS的刺激能够引起BMEC的氧化应激反应,而植物提取物复合制剂的添加能够缓解炎症BMEC的氧化应激水平。SOD、CAT和GSH-Px是动物机体内广泛存在的抗氧化酶,能够消除氧自由基的产生,维持机体的动态平衡[26-27]。本试验中,植物提取物复合制剂组T-AOC及T-SOD、CAT和GSH-Px活性显著高于LPS组,说明植物提取物复合制剂能够提高炎症BMEC的抗氧化能力,缓解炎症BMEC的氧化应激水平。

3.3 植物提取物复合制剂缓解BMEC炎症反应的分子机制

转录组测序技术能够揭示机体组织或细胞在特异生物学状态下的差异表达基因[28-29],并为后续的差异性分析奠定数据基础,已广泛应用于奶牛乳房炎的研究当中[30-33]。高通量测序的准确性依赖于碱基值(Q30)和测序获得的总读数,本研究中,LPS组和WELPS70组总读数均在43 130 614个以上,Q30值均在93.22%以上,且与参考序列的比对效率均在94.69%以上,说明测序结果准确,所选参考基因能够满足后续分析。
本研究结果显示,LPS组与WELPS70组的BMEC中差异表达基因共有3 573个,与LPS组相比,处理组中上调基因1 359个,下调基因2 214个。对差异表达基因进行GO功能注释和KEGG功能注释分析,将369个注释到免疫系统过程(GO功能注释)和免疫系统通路(KEGG功能注释)的差异表达基因定义为差异表达免疫基因,与LPS组相比,WELPS70组中上调差异表达免疫基因141个,下调差异表达免疫基因228个。基因表达量的变化影响其表达蛋白质和因子的分泌发生改变,并通过一系列的信号通路过程最终对机体产生重要影响[34]
GO富集分析发现,差异表达免疫基因主要富集在调节IL-17生成、白细胞介导的细胞毒素作用、T细胞增殖等生物学过程。其中,白细胞介导的细胞毒素作用、免疫受体的体细胞多样性和抗菌性体液反应属于生物学过程中的免疫系统过程。KEGG通路富集分析发现,差异表达免疫基因在自然杀伤细胞介导的细胞毒素作用、NLR信号通路、趋化因子信号通路和IL-17信号通路均有较高的富集,IL-17信号通路和NLR信号通路可能是本植物提取物复合制剂差异调控BMEC炎症反应的主要信号通路。
在基因功能互作网络图分析中,本研究选用BC值筛选差异表达免疫基因中的关键基因。BC值能够量化网络图中1个节点控制其他节点之间信息流的能力[35],即BC值越高,说明该基因对网络的连接性越重要[36],通常用来评估哺乳动物调控网络的生物学意义[37]。本研究选取BC值最高的10个基因为关键基因,与LPS组相比,其中TLR2、PRKCBCXCL10和FOS等8个基因为显著下调基因,CSF2、PIK3R3为显著上调基因。
TLR2属于Toll样受体家族成员,能够与淋巴细胞抗原96(LY96)、Toll样受体1(TLR1)或Toll样受体6(TLR6)协同介导对细菌脂蛋白或脂肽的固有免疫反应,并通过髓样分化因子88(MYD88)和肿瘤坏死因子受体相关因子6(TRAF6)作用,活化NF-κB信号通路,从而产生炎症反应和细胞因子的分泌。TLR4是LPS的识别受体,但是本研究中没有观测到TLR4的差异显著性变化。然而,也有报道指出,LPS刺激的奶牛子宫内膜细胞中TLR2的表达量显著提升,因此推测在BMEC中,LPS刺激也会导致TLR2表达量的提升[38]。同时,Toshchakov等[39]研究发现,TLR2激动剂能够通过不同的信号通路引起TLR4诱导的促炎性细胞因子基因表达量的提升。本试验中,植物提取物复合制剂能够抑制TLR2的表达。FOS编码的FOS蛋白能与JUN蛋白组成二聚体复合物转录激活蛋白-1(AP-1),是调节炎症因子表达的重要转录因子[40],同时是IL-17信号通路、MAPK等炎症信号通路的下游信号因子[34]。本试验中观测到FOS基因的表达量显著下调,同时其上游调控基因MAPK12的表达量也呈现显著下调,推测植物提取物复合制剂能够抑制MAPK12与FOS基因的表达,抑制炎症细胞因子的释放,从而抑制BMEC产生过度炎症反应。CXCL10是参与多种生物过程的促炎性细胞因子,本试验中观测到CXCL10的表达量显著降低,同时也观测到趋化因子2(CXCL2)、趋化因子配体20(CCL20)和IL-1β等促炎性细胞因子基因的表达量均显著降低。
CSF2是生长因子样细胞因子,类似的细胞因子还有IL-17等[41]。PIK3R3能够通过自身SH2结构域结合蛋白质酪氨酸激酶并调节其酶活性,蛋白质酪氨酸激酶在细胞的生长、增殖和分化中具有重要作用。PRKCB是钙激活的磷脂和二酰甘油依赖的丝氨酸/苏氨酸蛋白激酶,参与氧化应激诱导的细胞凋亡等多种生物学过程。本试验中,植物提取物复合制剂组细胞的相对增殖率显著高于LPS组,可能跟CSF2和PIK3R3基因表达量的显著上调和PRKCB基因表达量的显著下调有关。

4 结论

① 植物提取物复合制剂能够降低LPS诱导的BMEC中TNF-α、IL-1β、IL-6和IL-8的含量,进而缓解BMEC的炎症反应。
② 植物提取物复合制剂能够降低LPS诱导的BMEC中MDA含量和iNOS活性,提高T-AOC及T-SOD、CAT和GSH-Px活性,进而提升BMEC抗氧化能力,缓解其氧化应激水平。
③ 植物提取物复合制剂调控的差异免疫基因主要富集于IL-17信号通路和NLR信号通路等免疫调控信号通路,其中TLR2、CXCL10和CSF2等10个基因起到关键连接性作用。
[1]
WELLNITZ O, BRUCKMAIER R M. The innate immune response of the bovine mammary gland to bacterial infection[J]. Veterinary Journal, 2012, 192(2):148-152.

DOI PMID

[2]
ASADPOUR R, ZANGIBAND P, NOFOUZI K, et al. Differential expression of antioxidant genes during clinical mastitis of cow caused by Staphylococcus aureus and Escherichia coli[J]. Veterinarski Arhiv, 2021, 91(5):451-458.

DOI

[3]
MCCLENAHAN D J, SOTOS J P, CZUPRYNSKI C J. Cytokine response of bovine mammary gland epithelial cells to Escherichia coli,coliform culture filtrate,or lipopolysaccharide[J]. American Journal of Veterinary Research, 2005, 66(9):1590-1597.

DOI

[4]
BOUDJELLAB N, CHAN-TANG H S, LI X, et al. Interleukin 8 response by bovine mammary epithelial cells to lipopolysaccharide stimulation[J]. American Journal of Veterinary Research, 1998, 59(12):1563-1567.

PMID

[5]
VANGROENWEGHE F, RAINARD P, PAAPE M, et al. Increase of Escherichia coli inoculum doses induces faster innate immune response in primiparous cows[J]. Journal of Dairy Science, 2004, 87(12):4132-4144.

DOI

[6]
OVIEDO-BOYSO J, VALDEZ-ALARCÓN J J, CAJERO-JUÁREZ M, et al. Innate immune response of bovine mammary gland to pathogenic bacteria responsible for mastitis[J]. The Journal of Infection, 2007, 54(4):399-409.

DOI

[7]
BOUTET P, SULON J, CLOSSET R, et al. Prolactin-induced activation of nuclear factor kappaB in bovine mammary epithelial cells:role in chronic mastitis[J]. Journal of Dairy Science, 2007, 90(1):155-164.

DOI

[8]
高瑞峰. 绿原酸抗乳腺炎作用及机制研究[D]. 博士学位论文. 长春: 吉林大学, 2014:12-17.

GAO R F. Anti-inflammatory effect and mechanism of chlorogenic acid on mastitis[D]. Ph.D.Thesis. Changchun: Jilin University, 2014:12-17. (in Chinese)

[9]
RIZWAN M, DURRANI A Z, AHMAD T, et al. Comparative therapeutic efficacy of procaine penicillin,Phyllanthus emblica fruit extract and Cocos nucifera oil against subclinical mastitis[J]. Livestock Science, 2021, 251:104655.

DOI

[10]
LOPES T S, FONTOURA P S, OLIVEIRA A, et al. Use of plant extracts and essential oils in the control of bovine mastitis[J]. Research in Veterinary Science, 2020, 131:186-193.

DOI PMID

[11]
OHNO T, KITA M, YAMAOKA Y, et al. Antimicrobial activity of essential oils against Helicobacter pylori[J]. Helicobacter, 2003, 8(3):207-215.

DOI

[12]
DOMADIA P, SWARUP S, BHUNIA A, et al. Inhibition of bacterial cell division protein FtsZ by cinnamaldehyde[J]. Biochemical Pharmacology, 2007, 74(6):831-840.

DOI PMID

[13]
LAI J L, LIU Y H, PENG Y C, et al. Indirubin treatment of lipopolysaccharide-induced mastitis in a mouse model and activity in mouse mammary epithelial cells[J]. Mediators of Inflammation, 2017, 2017:3082805.

[14]
LEE K H, HSU K C, WANG Y S, et al. Effects of Taraxacum mongolicum extract on lipopolysaccharide-induced nitric oxide and cytokines production by bovine peripheral blood mononuclear cells[J]. Taiwan Veterinary Journal, 2016, 42(4):203-212.

DOI

[15]
赵国玲, 刘佳佳, 林丹, 等. 金银花化学成分及药理研究进展[J]. 中成药, 2002, 24(12):973-976.

ZHAO G L, LIU J J, LIN D, et al. Studies on the chemical constituents in Flos lonicerae[J]. Chinese Traditional Patent Medicine, 2002, 24(12):973-976. (in Chinese)

[16]
洪金锁, 闵继光, 刘建雷. 中草药添加剂(蒲公英流浸膏)对奶牛乳房炎及其生产性能的影响[J]. 当代畜牧, 2018(6):13-17.

HONG J S, MIN J G, LIU J L. Effect of herbal additive (dandelion fluid infusion) on mastitis and its production performance in dairy cows[J]. Contemporary Animal Husbandry, 2018(6):13-17. (in Chinese)

[17]
周艳, 张涛, 郑勤琴, 等. 连翘有效成分提取及提取物对奶牛乳房炎致病菌的抑制效果[J]. 生物技术进展, 2014, 4(4):292-295.

DOI

ZHOU Y, ZHANG T, ZHENG Q Q, et al. Extracting active components of Forsythia suspensa and the extracts inhibitory effect on cow mastitis pathogens[J]. Current Biotechnology, 2014, 4(4):292-295. (in Chinese)

DOI

[18]
安胜英, 刘观忠, 景大明, 等. 三种植物提取物对蛋鸡初产性能的影响[J]. 黑龙江畜牧兽医, 2018(4):162-164.

AN S Y, LIU G Z, JING D M, et al. Effects of three plant extracts on primary performance of laying hens[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(4):162-164. (in Chinese)

[19]
SZKLARCZYK D, GABLE A L, LYON D, et al. STRING v11:protein-protein association networks with increased coverage,supporting functional discovery in genome-wide experimental datasets[J]. Nucleic Acids Research, 2019, 47(D1):D607-D613.

DOI

[20]
SUN X D, LUO S B, JIANG C H, et al. Sodium butyrate reduces bovine mammary epithelial cell inflammatory responses induced by exogenous lipopolysaccharide,by inactivating NF-κB signaling[J]. Journal of Dairy Science, 2020, 103(9):8388-8397.

DOI

[21]
YANG J H, LIU Y H, LIN C J, et al. Regularity of Toll-like receptors in bovine mammary epithelial cells induced by Mycoplasma bovis[J]. Frontiers in Veterinary Science, 2022, 9:846700.

DOI

[22]
WANG J J, GUO C M, WEI Z K, et al. Morin suppresses inflammatory cytokine expression by downregulation of nuclear factor-κB and mitogen-activated protein kinase (MAPK) signaling pathways in lipopolysaccharide-stimulated primary bovine mammary epithelial cells[J]. Journal of Dairy Science, 2016, 99(4):3016-3022.

DOI PMID

[23]
ZHANG L L, HOU X, SUN L C, et al. Corrigendum:Staphylococcus aureus bacteriophage suppresses LPS-induced inflammation in MAC-T bovine mammary epithelial cells[J]. Frontiers in Microbiology, 2018, 9:2511.

DOI

[24]
ZHUANG C C, HUO W L, LIU G, et al. In vitro immune responses of bovine mammary epithelial cells induced by Escherichia coli,with multidrug resistant extended-spectrum β-lactamase,isolated from mastitic milk[J]. Microbial Pathogenesis, 2020, 149:104494.

DOI

[25]
卢德勋. 动物营养学科发展在战略方向上的重大突破:构建动物健康营养理论和技术体系及其实际应用[J]. 动物营养学报, 2021, 33(1):1-12.

DOI

LU D X. A major breakthrough in development of animal nutrition in strategic direction:building an animal health and nutrition theory and technology system and its application[J]. Chinese Journal of Animal Nutrition, 2021, 33(1):1-12. (in Chinese)

[26]
YANG M, KUANG M Q, WANG G L, et al. Choline attenuates heat stress-induced oxidative injury and apoptosis in bovine mammary epithelial cells by modulating PERK/Nrf-2 signaling pathway[J]. Molecular Immunology, 2021, 135:388-397.

DOI PMID

[27]
LI L, TANG W, ZHAO M, et al. Study on the regulation mechanism of lipopolysaccharide on oxidative stress and lipid metabolism of bovine mammary epithelial cells[J]. Physiological Research, 2021, 70(5):777-785.

DOI PMID

[28]
WANG Z, GERSTEIN M, SNYDER M. RNA-seq:a revolutionary tool for transcriptomics[J]. Nature Reviews Genetics, 2009, 10(1):57-63.

DOI

[29]
WANG X Z, SU F, YU X H, et al. RNA-seq whole transcriptome analysis of bovine mammary epithelial cells in response to intracellular Staphylococcus aureus[J]. Frontiers in Veterinary Science, 2020, 7:642.

DOI

[30]
LI Y H, HU Q C, LUORENG Z M, et al. Differential mRNA expression profiling reveals the role of miR-375 in inflammation of bovine mammary epithelial cells[J]. Animals, 2022, 12(11):1431.

DOI

[31]
JING H Y, CHEN Y, LIANG W, et al. Effects of selenium on MAC-T cells in bovine mastitis:transcriptome analysis of exosomal mRNA interactions[J]. Biological Trace Element Research, 2021, 199(8):2904-2912.

DOI

[32]
CHENG Z R, PALMA-VERA S, BUGGIOTTI L, et al. Transcriptomic analysis of circulating leukocytes obtained during the recovery from clinical mastitis caused by Escherichia coli in Holstein dairy cows[J]. Animals, 2022, 12(16):2146.

DOI

[33]
YANG J, HU Q C, WANG J P, et al. RNA-seq reveals the role of miR-29c in regulating inflammation and oxidative stress of bovine mammary epithelial cells[J]. Frontiers in Veterinary Science, 2022, 9:865415.

DOI

[34]
霍金金, 褚耀诚, 金娜, 等. 基于转录组测序分析研究枸芪多糖对育肥猪肠黏膜免疫功能的作用机理[J]. 动物营养学报, 2021, 33(2):1100-1110.

DOI

HUO J J, CHU Y C, JIN N, et al. Mechanism of Gouqi polysaccharides on intestinal mucosal immune function of finishing pigs based on transcriptome sequencing[J]. Chinese Journal of Animal Nutrition, 2021, 33(2):1100-1110. (in Chinese)

[35]
SHARMA P, BHATTACHARYYA D K, KALITA J K. Centrality analysis in PPI networks[C]//2016 International Conference on Accessibility to Digital World (ICADW). Guwahati:IEEE, 2016:135-140.

[36]
TESSIER L, CÔTÉ O, CLARK M E, et al. Impaired response of the bronchial epithelium to inflammation characterizes severe equine asthma[J]. BMC Genomics, 2017, 18(1):708.

DOI PMID

[37]
POTAPOV A P, VOSS N, SASSE N, et al. Topology of mammalian transcription networks[J]. Genome Informatics:International Conference on Genome Informatics, 2005, 16(2):270-278.

[38]
FU Y H, LIU B, FENG X S, et al. Lipopolysaccharide increases Toll-like receptor 4 and downstream Toll-like receptor signaling molecules expression in bovine endometrial epithelial cells[J]. Veterinary Immunology and Immunopathology, 2013, 151(1/2):20-27.

DOI

[39]
TOSHCHAKOV V, JONES B W, PERERA P Y, et al. TLR4,but not TLR2,mediates IFN-beta-induced STAT1alpha/beta-dependent gene expression in macrophages[J]. Nature Immunology, 2002, 3(4):392-398.

DOI

[40]
MAKINO H, SEKI S, YAHARA Y, et al. A selective inhibition of c-Fos/activator protein-1 as a potential therapeutic target for intervertebral disc degeneration and associated pain[J]. Scientific Reports, 2017, 7(1):16983.

DOI PMID

[41]
KENT-DENNIS C, ASCHENBACH J R, GRIEBEL P J, et al. Effects of lipopolysaccharide exposure in primary bovine ruminal epithelial cells[J]. Journal of Dairy Science, 2020, 103(10):9587-9603.

DOI

文章导航

/