研究论文

异常毕赤酵母和纤维素酶对甜高粱青贮质量及微生物多样性的影响

  • 任海伟 , 1, 2 ,
  • 黎金莲 1 ,
  • 南亭植 1 ,
  • 卢娜娜 1 ,
  • 郭晓鹏 1 ,
  • 陆栋 3 ,
  • 刘瑞媛 3 ,
  • 张丙云 , 1, *
展开
  • 1 兰州理工大学生命科学与工程学院,兰州 730050
  • 2 西北低碳城镇支撑技术省部共建协同创新中心,兰州 730050
  • 3 中国科学院近代物理研究所,兰州 730000
*张丙云,副教授,硕士生导师,E-mail:

任海伟(1983—),男,山西孝义人,教授,博士,主要从事农产品加工副产物综合利用研究。E-mail:

收稿日期: 2022-10-13

  网络出版日期: 2023-06-08

基金资助

国家自然科学基金项目(51666010)

甘肃省自然科学基金重点项目(21JR7RA203)

中国博士后科学基金项目(2019T120961)

Effects of Pichia anomala and Cellulase on Ensiling Quality and Microbial Diversity of Sweet Sorghum Silages

  • REN Haiwei , 1, 2 ,
  • LI Jinlian 1 ,
  • NAN Tingzhi 1 ,
  • LU Nana 1 ,
  • GUO Xiaopeng 1 ,
  • LU Dong 3 ,
  • LIU Ruiyuan 3 ,
  • ZHANG Bingyun , 1, *
Expand
  • 1 School of Life Science and Engineering, Lanzhou University of Technology, Lanzhou 730050, China
  • 2 Northwest Low-Carbon Town Support Technology Collaborative Innovation Center, Lanzhou 730050, China
  • 3 Institute of Modern Physics, Chinese Academy of Sciences, Lanzhou 730000, China
*associate professor, E-mail:

Received date: 2022-10-13

  Online published: 2023-06-08

摘要

本试验旨在探究添加异常毕赤酵母和纤维素酶对甜高粱青贮质量及微生物多样性的动态影响,并采用隶属函数法对青贮质量进行综合评价,以筛选适宜添加剂。试验设置纤维素酶组(CE组)、异常毕赤酵母组(PA组)、异常毕赤酵母+纤维素酶组(PC组)3个添加剂组和1个空白对照组(CK组),分别于青贮第7、14和21天时对其感官质量、常规营养成分含量、发酵品质以及微生物群落结构进行分析。结果表明:1)3个添加剂组酸性洗涤纤维和中性洗涤纤维含量在青贮第21天时均显著低于CK组(P<0.05),相对饲喂价值显著高于CK组(P<0.05)。PA组在青贮第21天时可溶性碳水化合物、粗蛋白质和淀粉含量均显著高于其他3个组(P<0.05),主要营养成分保存良好。2)整个青贮过程中,4个组pH、氨态氮/总氮值以及有机酸组成和含量均处于优良青贮范围。基于隶属函数法分析发现,青贮第21天时PA组隶属函数值平均值最高,青贮质量综合评价效果最好。3)4个组在属水平上的微生物群落包含泛菌属(Pantoea)、明串珠菌属(Leuconostoc)和肠杆菌属(Enterobacter)以及少量乳杆菌属(Lactobacillus)、沙雷氏菌属(Serratia)、片球菌属(Pediococcus)和葡糖杆菌属(Gluconobacter)等28个属。PA组在整个青贮期间乳杆菌属、明串珠菌属、片球菌属、魏斯氏菌属(Weissella)、双歧杆菌属(Bifidobacterium)和肠球菌属(Enterococcus)等6种乳酸菌总相对丰度为19.05%~23.61%,同时含有较高相对丰度的泛菌属和葡糖杆菌属,通过优化细菌群落结构形成了一种新的稳定的青贮微生态体系。综上所述,添加异常毕赤酵母可以明显改善甜高粱的青贮质量,有望成为一种经济高效且适用于甜高粱的专用青贮添加剂。

本文引用格式

任海伟 , 黎金莲 , 南亭植 , 卢娜娜 , 郭晓鹏 , 陆栋 , 刘瑞媛 , 张丙云 . 异常毕赤酵母和纤维素酶对甜高粱青贮质量及微生物多样性的影响[J]. 动物营养学报, 2023 , 35(6) : 4011 -4027 . DOI: 10.12418/CJAN2023.372

Abstract

This experiment was conducted to investigate the dynamic effects of Pichia anomala and cellulase on ensiling quality and microbial diversity of sweet sorghum silages. A membership function method was used to analyze the comprehensive evaluation of ensiling quality, and thereby to screen a suitable additive for sweet sorghum silages. Silage samples were divided into three additive groups including cellulase group (CE group), Pichia anomala group (PA group) and Pichia anomala+cellulase group (PC group), and a blank control group (CK group), all of which were investigated for sensory quality, conventional nutrient contents, fermentation quality and microbial community structure at days 7, 14 and 21 of silage, respectively. The results showed as follows: 1) compared with the CK group, the contents of acid detergent fiber and neutral detergent fiber in CE, PA and PC groups were significantly decreased at day 21 of silage (P<0.05), while their relative feed values were significantly increased (P<0.05). The contents of water-soluble carbohydrates, crude protein and starch in PA group were significantly higher than those in the other three groups at 21 days of silage (P<0.05), indicating that the main nutrient components of sweet sorghum were well preserved after ensiling. 2) During ensiling, the fermentation characteristics including pH, the ratio of ammonia nitrogen to total nitrogen as well as the composition and contents of organic acids of all silages were in the range of excellent fermentation quality, which was considered to up to the standard of high-quality silage. Furthermore, it was found that the average membership function value in PA group was essentially higher than that in the other groups based on the membership function method, resulting in the superior comprehensive performance of ensiling quality in PA group at day 21 of silage. 3) The microbial community at genus level in each group included in 28 genera such as Pantoea, Leuconostoc and Enterobacter, accompanied by minor amounts of Lactobacillus, Serratia, Pediococcus and Glucobacillus. Among them, the total relative abundance of lactic acid bacteria, including Lactobacillus, Leuconostoc, Pediococcus, Weissella, Bifidobacterium and Enterococcus, in PA group ranged from 19.05% to 23.61%, which coexisted with relatively higher abundances of Pantoea and Gluconobacte simultaneously. Therefore, it was considered that a new stable silage micro-ecosystem was built in PA group by optimizing bacterial community structure. In conclusion, Pichia anomala can significantly improve the ensiling quality of sweet sorghum silages, which is expected to be an economical and efficient special silage additive for sweet sorghum.

随着我国居民生活品质的提升和消费升级,畜产品市场需求呈现刚性增长,动物饲料需求随之持续增加,进口量大幅上升。2021年,我国玉米、小麦、大麦和高粱等饲用谷物原料的累计进口量约6 033.3万t,较上年增长84.2%,寻求可替代的非常规饲料原料迫在眉睫[1]。甜高粱[Sorghum bicolor (L.) Moench]属禾本科C4植物,光合效率高,生长周期短,具有抗逆性强、抗旱涝、耐盐碱和耐贫瘠等优势,生物产量高达169.005 t/hm2。甜高粱茎秆含糖量高,糖锤度为16%~22%,富含蔗糖、葡萄糖和果糖等,是一种优质的饲料作物[2]。然而,鲜绿甜高粱因其季节性收获、水分糖分含量高等特点而无法长时间保质贮存,而且茎秆粗硬、木质化程度高,不易萎蔫调制干草。青贮作为一种饲草保存的常用手段,可有效降低营养物质损失,改善木质纤维降解性能,提高甜高粱适口性和饲喂价值[3]
研究表明,适宜的添加剂对青贮发酵过程具有积极调控作用,能有效提高青贮质量和营养价值。青贮添加剂一般分为发酵促进剂(乳酸菌、酶制剂等)、发酵抑制剂(甲醛、酸等)、有氧腐败抑制剂[乙酸(AA)、丙酸(PPA)、苯甲酸等]以及营养添加剂(尿素、糖蜜等)等[4]。已有研究证实,添加植物乳杆菌(Lactobacillus plantarum)、布氏乳杆菌(Lactobacillus buchneri)等乳酸菌发酵剂可改善青贮过程中乳酸菌等优势微生物的发酵效率,促进青贮pH下降,改善发酵品质,提高饲料适口性[5-6]。添加纤维素酶、木聚糖酶等酶制剂能促进植物细胞壁降解和细胞内容物充分释放,提高发酵质量[7]。添加酿酒酵母(Saccharomyces cerevisiae)、奇异酵母(Saccharomyces paradoxus)等酵母菌剂不仅能抑制青贮饲料中的真菌繁殖,降低霉菌毒素污染,还能调控乳酸菌代谢产物,抑制梭状芽孢杆菌和好氧细菌繁殖,减少营养物质损耗[8-9]。目前,学者们对乳酸菌剂、纤维素酶制剂等常规青贮添加剂的研究关注较多,而有关酵母菌剂的研究相对较少,且主要集中在酿酒酵母方面。酿酒酵母被视作一种能调节反刍动物瘤胃pH、增加纤维消化和减少甲烷产生的益生菌[10]。然而,也有研究表明酿酒酵母在高剂量(约108 CFU/g)下会显著提高青贮玉米pH和氨态氮(NH3-N)含量,降低有机酸含量和有氧稳定性,对青贮质量造成不良影响[11]。酿酒酵母还会在青贮过程中进行酒精发酵,将糖转化为乙醇和二氧化碳,进一步降低可溶性碳水化合物(WSC)和干物质(DM)含量[12]。因此,酿酒酵母与青贮过程中的营养损失和有氧稳定性密切相关[13],其作为青贮添加剂的作用效果还存在一定争议,有必要寻找新的酵母菌剂进行青贮质量调控。
异常毕赤酵母(Pichia anomala)是一种嗜杀酵母,分泌的小分子蛋白质或糖蛋白通过作用于细胞壁β-1,3-D-葡聚糖受体,将同族或亲缘关系较近的菌株杀死,具有良好的生物防治作用[14],常用于果蔬、谷物等粮食贮存。研究表明,异常毕赤酵母不仅对厌氧、高渗透压、低pH和低水分活度等极端环境有很好的耐受性[15],还能产生植酸酶、外切几丁质酶和β-1,3-葡聚糖酶,有助于降低饲料中抗营养物质的含量,提高动物对营养物质的消化吸收率[16-17]。同时,异常毕赤酵母抗真菌活性好,生物安全性高,可用作动物饲料添加剂,在青贮玉米和青贮小麦中也有发现[18-19]。任海伟等[20]研究发现,接种异常毕赤酵母能有效减少干玉米秸秆与白菜混贮料的营养成分损失,显著降低纤维含量,提高乳酸(LA)含量和LA发酵强度,有效改善发酵品质。Olstorpe等[21-22]认为异常毕赤酵母存在竞争有限营养物质以及产生嗜杀因子、胞外酶和挥发性物质等多种抑菌机制,能显著抑制霉菌和肠杆菌生长,提高乳酸菌群多样性,适合作为谷物青贮发酵剂。所以,笔者推测异常毕赤酵母可凭借其独特的作用机制在制备甜高粱青贮饲料过程中发挥潜力,但这方面的研究还鲜有报道。
因此,本文以甜高粱为原料,探讨添加异常毕赤酵母、纤维素酶对甜高粱青贮过程中感官质量、常规营养成分含量、发酵品质及微生物多样性的影响,旨在探明不同添加剂对甜高粱的青贮作用效果,从而筛选成本低廉、作用效果优良的青贮添加剂,为甜高粱青贮饲料的调制和应用提供理论支撑。

1 材料与方法

1.1 试验材料

试验用鲜绿全株甜高粱(KFJT-3)取自中国科学院近代物理研究所白银种植基地,是由凯勒甜高粱种子经80 MeV/u碳离子、80 Gy剂量辐照筛选的生育期提前36 d的早熟新品系。甜高粱原料中DM含量为(416.42±2.03) g/kg FM,其余主要理化特性如表1所示。纤维素酶购于宁夏某生物技术有限公司,酶活性为50 000 U/g;异常毕赤酵母购于中国工业微生物菌种保藏管理中心(CICC),菌种编号1716。
表1 甜高粱主要理化特性

Table 1 Main physicochemical properties of sweet sorghumg/kg DM

项目
Item
可溶性碳水化合物
WSC
粗蛋白质
CP
淀粉
ST
酸性洗涤纤维
ADF
中性洗涤纤维
NDF
酸性洗涤木质素
ADL
含量 Content 213.15±1.57 71.37±0.43 171.73±0.44 195.66±0.56 384.85±0.99 86.82±2.31

1.2 青贮发酵试验设计

甜高粱植株收获后迅速运回实验室,铡刀切至1~2 cm长小段,准确称取36份200 g的甜高粱碎段,分别加入不同添加剂并充分混匀后迅速装入聚乙烯袋,真空抽气后密封,常温(20±2) ℃避光贮藏21 d,分别于第0(原料)、7、14和21天进行取样分析。试验设置纤维素酶组(CE组,纤维素酶添加量为0.2% FM,每袋原料均匀喷洒10 mL浓度为0.04 g/mL的纤维素酶溶液)、异常毕赤酵母组(PA组,异常毕赤酵母接种量为1×106 CFU/g FM,每袋原料均匀喷洒10 mL浓度为2×10⁷ CFU/mL活菌数的异常毕赤酵母菌悬液)和异常毕赤酵母+纤维素酶复合组(PC组,二者添加量均同上,每袋原料同时均匀喷洒5 mL浓度为0.08 g/mL的纤维素酶溶液和5 mL浓度为4×10⁷ CFU/mL活菌数的异常毕赤酵母菌悬液)3个添加剂组和1个空白对照组(CK组,仅喷洒等体积蒸馏水),每个组3个重复。

1.3 测定指标及方法

1.3.1 感官质量评定

参照德国农业协会(DLG)评分法从气味(14分)、结构(4分)和色泽(2分)3方面对甜高粱青贮感官质量进行评定,分为优良(20~16分)、尚好(15~10分)、中等(9~5分)和腐败(4~0分)4个等级[23]

1.3.2 常规营养成分含量测定

甜高粱青贮中DM含量采用105 ℃烘干恒重法测定;WSC含量采用蒽酮-硫酸比色法测定;总氮(TN)含量采用半自动凯氏定氮仪测定,粗蛋白质(CP)含量计算公式为CP=TN×6.25;淀粉(ST)含量采用酸水解法测定;酸性洗涤纤维(ADF)、中性洗涤纤维(NDF)和酸性洗涤木质素(ADL)含量采用F800纤维测定仪测定,纤维素(CL)、半纤维素(HC)和综纤维素(HoC)含量分别根据公式CL=ADF-ADL、HC=NDF-ADF和HoC=CL+HC计算。干物质损失率(LDM)、生物降解潜力(BDP)和相对饲喂价值(RFV)计算公式如下:
LDM=100×[(贮存前质量×原料DM%-贮存后质量×贮存料DM%)/(贮存前质量×原料DM%)];
BDP=HoC/ADL;
RFV=[(88.9-0.779ADF%)×120/NDF%]/1.29[24]

1.3.3 发酵品质测定

青贮pH采用酸度计(UB-7)测定;NH3-N含量采用苯酚-次氯酸比色法测定;LA、AA和PPA等有机酸含量采用高效液相色谱法测定[20],测试条件:色谱柱(Shodex RS-Pak KC-811),柱温32 ℃,检测器(Jasco UV-2070)210 nm,流动相0.01 mol/L磷酸氢二钾(pH 2.5)和甲醇,流速0.4 mL/min,进样量10 μL。

1.3.4 基于隶属函数法的青贮质量综合评价

采用模糊数学隶属函数法对4个组青贮质量进行综合评价,计算公式为:
Rxi(+)=(Xi-Xmin)/(Xmax-Xmin);
Rxi(-)=1-(Xi-Xmin)/(Xmax-Xmin)。
式中:Rxi(+)表示与饲料品质呈正相关指标隶属函数值;Rxi(-)表示与饲料品质呈负相关指标隶属函数值;Xi表示该指标测定值;XminXmax分别表示该指标最小值和最大值[24]

1.3.5 基于高通量测序技术的微生物多样性分析

无菌操作环境下取250~500 mg青贮样品置于2.0 mL离心管中,加入850 μL MN NucleoSpin 96 Soi DNA提取试剂盒裂解液,在1 200 r/min和70 ℃条件下振荡10 min,然后用0.22 μm滤膜过滤后将滤膜剪成小块获得样品总DNA。采用PCR仪对细菌16S rDNA基因进行扩增,扩增区域为16S rDNA V3~V4区,选择引物为338F(5'-ACTCCTACGGGAGGCAGCA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')。每个样本3个重复,PCR产物经2%琼脂糖凝胶电泳检测合格后,通过Illumina MiSeq平台测序。将测序结果与NCBI基因库比对,按97%相似性水平划分操作分类单元(OTU),利用QIIME软件计算alpha多样性指数(ACE指数和Shannon指数),选取相对丰度高于1%的细菌类群进行属水平分析[25]

1.4 数据统计分析

基础数据采用Excel 2007软件进行整理,数据结果用“平均值±标准差”表示,采用Origin Pro 9.1软件绘图;采用SPSS 28.0软件进行双因素方差分析和Duncan氏法多重比较检验,其中P<0.05代表差异显著,P>0.05代表差异不显著。

2 结果与分析

2.1 异常毕赤酵母和纤维素酶对甜高粱青贮感官质量的影响

感官质量评定可初步判断青贮是否发生腐败变质。一般认为,优质青贮的色泽与原料接近,气味酸香,茎叶结构清晰可见,湿润不黏手[23]。本试验中,4个组甜高粱青贮在第7天时感官质量评定等级均为尚好(12~13分),第14和21天时转为优良(18~19分),未发生霉变现象,总体色泽接近甜高粱原色,茎叶结构保持良好,具有浓郁酸香气味;青贮第21天时,3个添加剂组感官质量评定得分(18.5~19分)均高于CK组(18分),说明加入添加剂有利于提高甜高粱青贮的感官质量。这与董妙音等[26]添加青贮菌剂可以改善甜高粱青贮感官质量的结论相一致。

2.2 异常毕赤酵母和纤维素酶对甜高粱青贮常规营养成分含量的影响

2.2.1 DM含量和LDM

表2可知,青贮第7天时,4个组DM含量均显著低于甜高粱原料(第0天)(P<0.05);青贮第14和21天,4个组DM含量与第7天相比均未发生显著变化(P>0.05),而PC组DM含量在青贮第21天时显著低于青贮第14天时(P<0.05),且CE和PC组DM含量在青贮第14天时显著高于CK组(P<0.05)。此外,青贮第7天时,CE组和PA组LDM显著高于CK组(P<0.05);而青贮第14和21天时,3个添加剂组LDM均显著低于CK组(P<0.05)。
表2 甜高粱青贮常规营养成分含量的动态变化

Table 2 Dynamic changes of conventional nutrient contents of sweet sorghum silages

项目
Items
时间
Time
组别 Groups 平均值
Mean
均值
标准误
SEM
PP-value
CK CE PA PC 时间
Time
添加剂
Additive
时间×添加剂
Time×additive
干物质
DM/(g/kg FM)
第0天 Day 0 416.42±20.31Aa 416.42±20.31Aa 416.42±20.31Aa 416.42±20.31Aa 416.42a 1.897 <0.001 0.210 0.281
第7天 Day 7 294.90±4.47Ab 290.42±12.34Ab 282.35±8.54Ab 293.54±4.93Abc 290.30bc
第14天 Day 14 277.06±5.57Bb 307.71±3.07Ab 279.37±12.96Bb 303.96±0.77Ab 292.03b
第21天 Day 21 274.29±22.77Ab 284.52±4.99Ab 283.30±4.31Ab 276.35±8.62Ac 279.62c
平均值 Mean 315.67A 324.77A 315.36A 322.57A
干物质损失率
LDM/%
第7天 Day 7 29.73±0.02Cc 30.59±0.04Bb 32.38±0.03Ab 29.70±0.01Cb 30.60b 0.015 <0.001 <0.001 <0.001
第14天 Day 14 33.98±0.02Ab 26.86±0.19Dc 33.18±0.23Ba 27.32±0.03Cc 30.34b
第21天 Day 21 34.71±0.05Aa 32.28±0.05Ca 32.32±0.05Cb 34.03±0.01Ba 33.33a
平均值 Mean 32.80A 29.91B 32.63A 30.35B
可溶性碳水
化合物
WSC/
(g/kg DM)
第0天 Day 0 213.15±1.58Aa 213.15±1.58Aa 213.15±1.58Aa 213.15±1.58Aa 213.15a 0.231 <0.001 <0.001 <0.001
第7天 Day 7 154.30±0.97Ab 144.57±4.38Bb 156.62±1.44Ab 131.74±0.58Cc 146.81b
第14天 Day 14 116.37±1.16Dc 125.91±0.78Cc 137.78±1.22Bc 147.82±0.87Ab 131.97c
第21天 Day 21 79.80±0.58Dd 111.26±0.71Cd 132.68±0.77Ad 121.09±1.70Bd 111.21d
平均值 Mean 140.91A 148.72A 160.06A 153.45A
粗蛋白质
CP/(g/kg DM)
第0天 Day 0 71.37±0.43Aa 71.37±0.43Aa 71.37±0.43Ab 71.37±0.43Aa 71.37a 0.059 <0.001 <0.001 <0.001
第7天 Day 7 70.24±0.51Bb 67.93±0.24Cb 73.92±0.44Aa 66.01±0.43Db 69.53b
第14天 Day 14 65.17±0.43Bc 65.44±0.26Bc 68.11±0.26Ac 63.42±0.43Cc 65.54c
第21天 Day 21 62.80±0.26Bd 60.93±0.24Cd 64.28±0.74Ad 60.92±0.23Cd 62.23d
平均值 Mean 67.40AB 66.42AB 69.42A 65.43B
淀粉
ST/(g/kg DM)
第0天 Day 0 171.73±0.44Ac 171.73±0.44Ab 171.73±0.44Ac 171.73±0.44Ab 171.74b 0.082 <0.001 <0.001 <0.001
第7天 Day 7 183.66±0.50Db 188.43±0.53Ba 198.31±0.53Aa 186.80±0.51Ca 189.30a
第14天 Day 14 188.41±1.03Aa 164.61±0.45Cc 179.27±0.83Bb 164.23±0.45Cd 174.13b
第21天 Day 21 160.20±0.43Cd 154.87±0.70Dd 172.19±0.47Ac 167.84±0.47Bc 163.78c
平均值 Mean 176.00AB 169.91B 180.38A 172.65AB

同列数据肩标不同小写字母表示同一组在不同时间点之间差异显著(P<0.05),同行数据肩标不同大写字母表示同一时间在不同组之间差异显著(P<0.05),同行或同列数据肩标相同字母表示差异不显著(P>0.05)。下表同。

Values in the same column with different small letter superscripts mean significant differences among different time points in the same group (P<0.05), while values in the same row with different capital letter superscripts mean significant differences among different groups at the same time point (P<0.05), and values in the same row or the same column with the same letter superscripts mean no significant difference (P>0.05). The same as below.

2.2.2 WSC、CP和ST含量

表2可知,青贮时间、添加剂及其二者的交互作用对WSC、CP和ST含量均有显著影响(P<0.05)。其中,4个组WSC和CP含量随着青贮时间的延长总体呈现显著下降的趋势(P<0.05),且3个添加剂组在青贮第14和21天时WSC含量均显著高于CK组(P<0.05);且在青贮第21天时,PA组WSC含量最高,PC组次之。此外,整个青贮期间,PA组CP含量均显著高于CK组和其他2个添加剂组(P<0.05)。对ST而言,4个组ST含量随着青贮时间的延长总体呈现先升高后降低趋势,其中PA组ST含量在整个青贮期间始终处于相对较高水平。

2.2.3 木质纤维组分含量

表3可知,青贮时间、添加剂及其二者的交互作用对木质纤维组分含量具有显著影响(P<0.05)。其中,青贮第14和21天时,4个组ADL含量均显著低于原料(P<0.05),但在整个青贮期间PA组ADL含量均显著高于CK组(P<0.05)。ADF和CL含量变化趋势相近,青贮第7天时3个添加剂组二者含量均显著高于原料(P<0.05),且随着青贮时间的延长总体呈现先升高后降低的趋势,而CK组二者含量在青贮第21天时均升至最高,且显著高于3个添加剂组(P<0.05)。NDF和HoC含量变化趋势相近,青贮第14和21天时,4个组二者含量均显著高于原料(P<0.05),而3个添加剂组二者含量在青贮第21天时均显著低于CK组(P<0.05)。这些木质纤维组分的联动变化使得4个组BDP在青贮14 d后均显著高于原料(P<0.05),且青贮第21天时3个添加剂组RFV也显著高于CK组(P<0.05),尤其PA组和PC组RFV处于较高水平。
表3 甜高粱青贮木质纤维组分含量的动态变化

Table 3 Dynamic changes of lignocellulosic component contents of sweet sorghum silages

项目
Items
时间
Time
组别 Groups 平均值
Mean
均值
标准误
SEM
PP-value
CK CE PA PC 时间
Time
添加剂
Additive
时间×添加剂
Time×additive
酸性洗涤纤维
ADF/(g/kg DM)
第0天 Day 0 195.66±0.56Ac 195.66±0.56Ad 195.66±0.56Ad 195.66±0.56Ad 195.66b 0.128 <0.001 <0.001 <0.001
第7天 Day 7 191.55±0.09Dd 261.96±0.38Aa 219.14±0.62Cb 233.92±1.05Ba 226.64a
第14天 Day 14 216.08±0.79Cb 225.13±1.69Bb 226.53±1.19Ba 231.57±1.11Ab 224.83a
第21天 Day 21 234.40±1.04Aa 210.45±0.94Dc 216.95±0.58Bc 214.76±1.15Cc 219.14a
平均值 Mean 209.42A 223.30A 214.57A 218.98A
中性洗涤纤维
NDF/(g/kg DM)
第0天 Day 0 384.85±0.99Ad 384.85±0.99Ad 384.85±0.99Ab 384.85±0.99Ad 384.85b 0.204 <0.001 <0.001 <0.001
第7天 Day 7 387.25±1.55Cc 421.96±1.00Bb 367.35±1.52Dc 445.57±2.01Ab 405.53b
第14天 Day 14 435.00±1.43Ba 426.46±0.98Ca 403.75±2.13Da 553.78±0.27Aa 454.75a
第21天 Day 21 430.78±0.38Ab 410.36±1.72Bc 404.86±2.01Ca 403.92±1.87Cc 412.48b
平均值 Mean 409.47B 410.91B 390.20B 447.03A
酸性洗涤
木质素
ADL/(g/kg DM)
第0天 Day 0 86.82±2.31Aa 86.82±2.31Aa 86.82±2.31Aa 86.82±2.31Aa 86.82a 0.288 <0.001 <0.001 <0.001
第7天 Day 7 71.79±2.17Bb 67.36±2.68Cc 87.16±1.90Aa 87.23±1.98Aa 78.39b
第14天 Day 14 75.44±1.57Bb 79.36±1.96Ab 79.87±0.97Ab 75.49±2.17Bc 77.54b
第21天 Day 21 71.80±1.40Bb 78.26±1.80Ab 79.52±1.24Ab 81.09±1.99Ab 77.67b
平均值 Mean 76.46C 77.95BC 83.34A 82.66AB
纤维素
CL/(g/kg DM)
第0天 Day 0 108.84±2.84Ad 108.84±2.84Ad 108.84±2.84Ad 108.84±2.84Ad 108.84b 0.291 <0.001 <0.001 <0.001
第7天 Day 7 119.76±2.08Dc 194.59±2.52Aa 131.98±1.31Cc 146.68±0.93Bb 148.26a
第14天 Day 14 140.64±1.99Cb 145.76±1.18Bb 146.66±1.53Ba 156.08±1.32Aa 147.29a
第21天 Day 21 162.60±2.22Aa 132.19±0.89Cc 137.43±1.44Bb 133.67±1.55Cc 141.47a
平均值 Mean 132.96A 145.35A 131.23A 136.32A
半纤维素
HC/(g/kg DM)
第0天 Day 0 189.19±1.44Ac 189.19±1.44Ab 189.19±1.44Aa 189.19±1.44Ac 189.19b 0.226 <0.001 <0.001 <0.001
第7天 Day 7 195.70±1.47Bb 160.00±1.19Cc 148.21±1.55Dc 211.65±1.87Ab 178.89b
第14天 Day 14 218.93±1.65Ba 201.33±0.83Ca 177.22±1.78Db 322.20±0.93Aa 229.92a
第21天 Day 21 196.38±0.90Bb 199.90±2.59Aa 187.91±2.41Ca 189.16±0.75Cc 193.34b
平均值 Mean 200.05B 187.61B 175.64B 228.05A
综纤维素
HoC/(g/kg DM)
第0天 Day 0 298.03±1.46Ac 298.03±1.46Ad 298.03±1.46Ab 298.03±1.46Ad 298.03c 0.291 <0.001 <0.001 <0.001
第7天 Day 7 315.46±0.66Cb 354.60±2.19Ba 280.19±1.89Dc 358.34±2.26Ab 327.15bc
第14天 Day 14 359.56±2.94Ba 347.10±1.63Cb 323.88±1.41Da 478.29±2.10Aa 377.21a
第21天 Day 21 358.99±1.33Aa 332.09±3.48Bc 325.34±3.01Ca 322.83±1.44Cc 334.81b
平均值 Mean 333.01AB 332.96AB 306.86B 364.37A
生物降解潜力
BDP
第0天 Day 0 3.43±0.11Ac 3.43±0.11Ac 3.43±0.11Ab 3.43±0.11Ac 3.44c 0.019 <0.001 <0.001 <0.001
第7天 Day 7 4.40±0.14Bb 5.27±0.24Aa 3.22±0.09Cc 4.11±0.11Bb 4.25b
第14天 Day 14 4.77±0.14Ba 4.38±0.13Cb 4.06±0.04Da 6.34±0.21Aa 4.89a
第21天 Day 21 5.00±0.12Aa 4.25±0.14Bb 4.09±0.10BCa 3.98±0.11Cb 4.33b
平均值 Mean 4.40A 4.33AB 3.70B 4.47A
相对饲喂价值
RFV
第0天 Day 0 178.04±0.39Aa 178.04±0.39Aa 178.04±0.39Ab 178.04±0.39Aa 178.04a 0.089 <0.001 <0.001 <0.001
第7天 Day 7 177.71±0.73Ba 151.00±0.34Cd 181.89±0.78Aa 147.56±0.75Dc 164.54b
第14天 Day 14 154.11±0.52Cb 155.66±0.64Bc 164.17±1.00Ac 119.03±0.19Dd 148.25c
第21天 Day 21 152.54±0.27Cc 164.36±0.55Bb 165.43±0.76ABc 166.21±0.97Ab 162.14b
平均值 Mean 165.60A 162.27AB 172.38A 152.71B

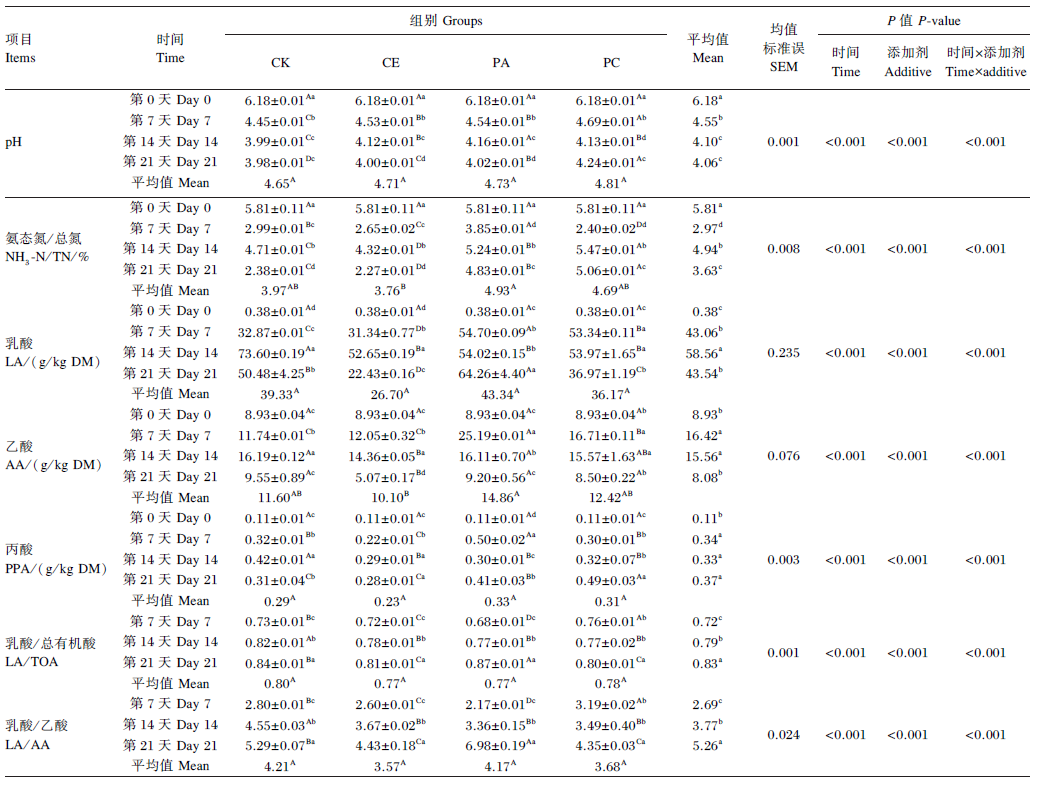
2.3 异常毕赤酵母和纤维素酶对甜高粱青贮发酵品质的影响

表4可知,青贮时间、添加剂及其二者的交互作用对甜高粱青贮pH以及NH3-N/TN值和有机酸含量均具有显著影响(P<0.05)。其中,青贮第7和14天时,4个组pH均显著低于原料(P<0.05);青贮第21天时,CK组pH与青贮第14天时相比变化不显著(P>0.05),CE组和PA组pH则继续显著下降(P<0.05),而PC组则显著升高至4.24(P<0.05)。总体而言,青贮第14和21天时,4个组pH均低于或趋近最优青贮pH 4.2。
表4 甜高粱青贮发酵品质的动态变化

Table 4 Dynamic changes of fermentation quality of sweet sorghum silages

就NH3-N含量而言,4个组在青贮第7天时NH3-N/TN值均显著低于原料(P<0.05),青贮7 d后均随着青贮时间的延长呈现先升高后降低的趋势。青贮第14和21天时,PA组和PC组NH3-N/TN值均显著高于CE组和CK组(P<0.05),其中CE组始终处于最低值。总体而言,4个组NH3-N/TN值均远低于腐败阈值10%[27]
从有机酸组成来看,青贮第7天时,4个组LA含量均显著高于原料(P<0.05),尤其PA组LA含量随着青贮时间的延长而显著提高(P<0.05),而CK组、CE组和PC组LA含量则呈现先升高后降低的趋势;青贮第21天时,PA组LA含量显著高于另外3个组(P<0.05),达到64.26 g/kg DM。此外,整个青贮期间,4个组AA含量均呈现先升高后降低的趋势,青贮第21天时PA和PC组AA含量均显著高于CE组(P<0.05)。整个青贮期间,4个组PPA含量均显著高于原料(P<0.05),但含量极低,最高值仅为0.49 g/kg DM。上述有机酸的联动变化使得4个组乳酸/总有机酸(LA/TOA)值和乳酸/乙酸(LA/AA)值均随着青贮时间的延长而显著升高(P<0.05),且青贮第21天时PA组2个比值均为最高,显著高于其他组(P<0.05),说明此时乳酸发酵强度最为旺盛。

2.4 异常毕赤酵母和纤维素酶对甜高粱青贮质量影响的综合评价

采用模糊数学隶属函数法对青贮第21天时甜高粱青贮质量进行综合评价,选取13个指标隶属函数值的平均值进行排名,平均值(≥0.5)越大代表综合质量越高[24],其中DM、WSC、CP、ST、LA和AA含量为正向指标,ADF、NDF、ADL、CL、HoC、NH3-N含量和pH为负向指标。由表5可知,4个组排名顺序依次为PA组>PC组>CE组>CK组,其中PA组隶属函数值平均值最高(0.81),明显优于其他3个组,说明单独添加异常毕赤酵母比单独添加纤维素酶或二者联用对甜高粱青贮质量的提升效果更明显。
表5 基于隶属函数法的甜高粱青贮质量综合评价

Table 5 Comprehensive evaluation of sweet sorghum silage quality based on membership function method

项目
Items
组别 Groups
CK CE PA PC
平均值 Mean 0.45 0.49 0.81 0.50
排名 Ranking 4 3 1 2

2.5 异常毕赤酵母和纤维素酶对甜高粱青贮过程中微生物多样性的影响

2.5.1 alpha多样性
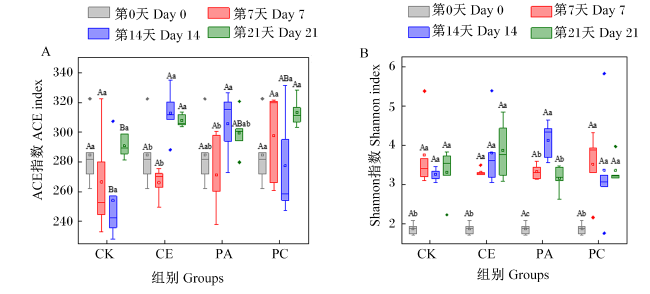
alpha多样性是分析微生物群落物种丰富度和均匀度的综合指标。由图1可知,与原料相比,CK组、PA组和PC组ACE指数在整个青贮期间均无显著变化(P>0.05),而CE组在青贮第14和21天时显著升高(P<0.05),说明添加纤维素酶能显著提升甜高粱青贮的微生物群落丰富度。此外,4个组Shannon指数在青贮第7天时均显著高于原料(P<0.05),且随着青贮时间的延长基本无显著变化(P>0.05),说明甜高粱经青贮发酵后微生物物种多样性增加,青贮微生态系统趋于复杂,这与Fang等[25]的研究结果一致。
图1 异常毕赤酵母和纤维素酶对甜高粱青贮微生物群落alpha多样性的影响

数据箱体标注相同字母表示差异不显著(P>0.05),不同小写字母表示同一组在不同时间点之间差异显著(P<0.05),不同大写字母表示同一时间在不同组之间差异显著(P<0.05)。

Fig.1 Effects of Pichia anomala and cellulase on alpha diversity of microbial community in sweet sorghum silages

Value boxes with the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant differences among different time points in the same group (P<0.05), and with different capital letter superscripts mean significant differences among different group at the same time point (P<0.05).

2.5.2 属水平微生物多样性分析

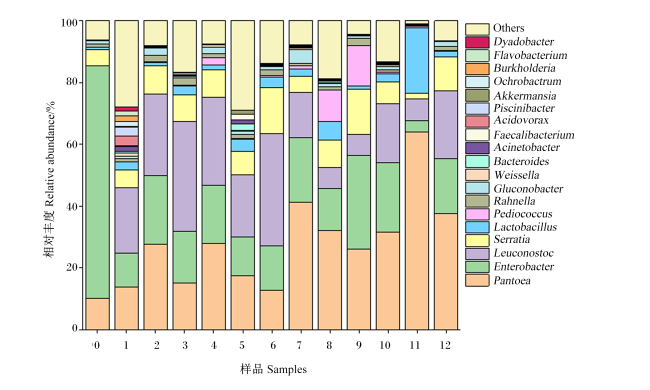
图2可知,甜高粱原料表面附着的属水平细菌主要包括肠杆菌属(Enterobacter,75.12%),其次为泛菌属(Pantoea,10.15%)、沙雷氏菌属(Serratia,5.27%)和拉恩氏菌属(Rahnella,1.21%)。青贮发酵后,4个组肠杆菌属相对丰度均显著下降(P<0.05),而泛菌属、明串珠菌属(Leuconostoc)、乳杆菌属(Lactobacillus)、片球菌属(Pediococcus)和魏斯氏菌属(Weissella)相对丰度则显著升高(P<0.05),总体呈现以泛菌属(12.74%~64.01%)、明串珠菌属(6.70%~36.46%)和肠杆菌属(3.65%~30.24%)为主,含少量乳杆菌属(0.98%~21.25%)、沙雷氏菌属(1.70%~14.85%)、片球菌属(0.07%~13.06%)和葡糖杆菌属(Gluconobacter,0.29%~4.36%)等28个细菌属组成的群落结构,其中乳酸菌群共包含明串珠菌属、乳杆菌属、片球菌属、魏斯氏菌属、双歧杆菌属(Bifidobacterium)和肠球菌属(Enterococcus)6个属。
图2 异常毕赤酵母和纤维素酶对甜高粱青贮微生物群落在属水平上组成的影响

样品0表示甜高粱原料,样品1~3分别表示CK组青贮第7、14和21天,样品4~6分别表示CE组青贮第7、14和21天,样品7~9分别表示PA组青贮第7、14和21天,样品10~12分别表示PC组青贮第7、14和21天。

Pantoea:泛菌属;Enterobacter:肠杆菌属;Leuconostoc:明串珠菌属;Serratia:沙雷氏菌属;Lactobacillus:乳杆菌属;Pediococcus:片球菌属;Rahnella:拉恩氏菌属;Gluconobacter:葡糖杆菌属;Weissella:魏斯氏菌属;Bacteroides:拟杆菌属;Acinetobacter:不动杆菌属;Faecalibacterium:粪杆菌属;Acidovorax:食酸菌属;Akkermansia:阿克曼菌属;Ochrobactrum:苍白杆菌属;Burkholderia:伯克氏菌属;Flavobacterium:黄杆菌属;Others:其他。图3同 the same as Fig.3

Fig.2 Effects of Pichia anomala and cellulase on microbial community composition at genus level in sweet sorghum silages

Sample 0 represented sweet sorghum raw material, samples 1 to 3 represented silage days 7, 14 and 21 in CK group, samples 4 to 6 represented silage days 7, 14 and 21 in CE group, samples 7 to 9 represented silage days 7, 14 and 21 in PA group, and samples 10 to 12 represented silage days 7, 14 and 21 in PC group, respectively.

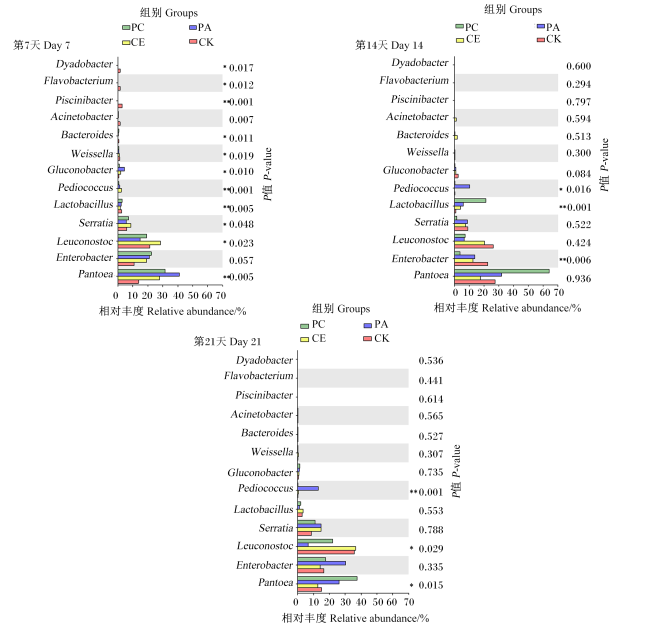
图2图3还可看出,随着青贮时间的延长,CK组和CE组微生物群落动态演绎过程较为相近,2组优势细菌始终为明串珠菌属,青贮第21天时相对丰度分别为35.61%和36.46%,显著高于PA组和PC组(P<0.05);其次为泛菌属和肠杆菌属,而其他乳酸菌群落相对丰度均相对较低,青贮第21天时CK和CE组总乳酸菌相对丰度均达到峰值,分别为39.73%和41.49%。PA组青贮第7和14天时优势菌为泛菌属(相对丰度分别为41.11%和31.92%),青贮第21天时演变为肠杆菌属(相对丰度为30.24%)。另外,PA组总乳酸菌相对丰度虽处于较低水平(19.05%~23.61%),但在青贮第7天时葡糖杆菌属相对丰度升至4.36%,在青贮第14和21天时片球菌属相对丰度分别升至10.22%和13.06%,且二者均显著高于其他3个组(P<0.05)。PC组优势菌始终为泛菌属,尤其在青贮第14天时相对丰度高达64.01%,而此时肠杆菌属相对丰度降至最低(3.65%),显著低于其他3个组(P<0.05),乳杆菌属相对丰度升至最高(21.25%),显著高于其他3个组(P<0.5)。总之,青贮发酵后甜高粱总乳酸菌相对丰度均显著升高(P<0.05),但随着时间的变化趋势不尽相同,相对丰度介于19.05%~41.49%。
图3 甜高粱青贮微生物群落在属水平上的比较分析

*表示P<0.05,**表示P<0.01。

Fig.3 Comparative analysis of microbial community at genus level in sweet sorghum silages

* indicated P<0.05, and ** indicated P<0.01.

3 讨论

3.1 异常毕赤酵母和纤维素酶对甜高粱青贮常规营养成分含量的影响

DM、WSC、CP和ST是评价青贮饲料发酵品质优劣的重要指标,可直观反映甜高粱青贮前后营养水平的变化情况。本试验中,甜高粱青贮中DM和WSC含量在青贮发酵初期(第7天)大幅下降,这可能是因为新鲜甜高粱自身存在细胞呼吸消耗,加之附生微生物活动未被有效抑制,进而代谢WSC生成二氧化碳,导致DM损失[28]。另据报道,青贮初期各种厌氧和兼性厌氧微生物快速繁殖,其引起的厌氧发酵损失可高达4.8%~51.1%[29]。同时,不同测定方法也会引起DM损失的差异性,如100 ℃烘箱干燥损失比70 ℃高了6.16%,因为干燥温度越高,青贮发酵产物(包括乳酸、挥发性脂肪酸、氨和醇等)的挥发损失程度越高[30]。本试验中,DM含量测定采用105 ℃干燥,这也可能是引起高LDM的原因之一。此外,WSC作为青贮微生物群落优先摄取的碳源,同样是乳酸菌发酵代谢产酸的直接底物,尤其是异型乳酸发酵通常伴随着二氧化碳的产生[28-29]。因此,乳酸菌代谢WSC产酸也是导致DM损失的一个重要原因,试验中WSC含量显著下降也说明了这一点。与此同时,CP、ST和纤维组分等也会在酸、酶和微生物的作用下发生降解,进一步加剧DM损失。但在青贮第14和21天时,3个添加剂组LDM均显著低于CK组,说明纤维素酶和异常毕赤酵母有助于降低甜高粱青贮的物质损失。
一般认为WSC≥60 g/kg DM可保证青贮发酵成功[25]。本试验中,甜高粱原料WSC含量远高于成功青贮所需条件,这为青贮pH快速下降和成功青贮提供了良好保障。青贮第14和21天时,3个添加剂组WSC含量均显著高于CK组,尤其在青贮第21天时PA组最高,PC组次之,说明添加纤维素酶和异常毕赤酵母均能有效提高甜高粱青贮WSC含量。这是因为一方面,纤维素酶属于β-1,4-葡聚糖-4-葡聚糖水解酶,通过作用于β-1,4-葡萄糖苷键能将植物细胞壁的纤维素降解为单糖或双糖,增加WSC含量[7,27]。另一方面,异常毕赤酵母分泌的嗜杀因子能与靶细胞壁的β-1,3-D-葡聚糖受体结合,通过水解细胞壁成分诱发毒性作用[31]。同时,异常毕赤酵母还具有广谱抗菌性,能对酵母和霉菌等不良微生物产生嗜杀作用,进而降低腐败微生物对WSC的消耗[32]。再者,异常毕赤酵母的中心碳代谢途径与酿酒酵母不同,对葡萄糖表现出不敏感(即Crabtree阴性),不具有高发酵糖能力,故而有利于减少WSC损耗[12,33]。这与任海伟等[20]报道添加异常毕赤酵母能够显著提高干玉米秸秆与废弃白菜混贮料WSC含量的研究结果一致。CP是青贮饲料的主要营养成分之一,青贮过程中易被植物蛋白酶和微生物酶作用水解为多肽、游离氨基酸和氨等非蛋白氮[34]。本试验中,PA组CP含量在整个青贮期间均显著高于其他组,可能是因为一方面异常毕赤酵母的嗜杀作用抑制了蛋白质分解菌活性,同时降低了其他不良微生物与乳酸菌等有益微生物的营养竞争,促进了乳酸菌繁殖产酸,致使蛋白酶失活,从而减少了蛋白质水解[21-22,34];另一方面,异常毕赤酵母还能产生植酸酶以及单细胞蛋白,可在一定程度上提高甜高粱青贮的CP含量[14,16]。ST作为青贮饲料的重要非结构性碳水化合物,也是反刍动物消化的重要营养物质,其在青贮过程中会被淀粉分解菌降解为葡萄糖、果糖等单糖而损耗[35]。本试验中,PA组ST含量始终保持较高水平,再次说明异常毕赤酵母的嗜杀活性对发酵体系中不良微生物起到了良好生物控制作用[15],有助于甜高粱青贮营养成分的保存。
木质纤维组分主要包括ADF、NDF、ADL、CL、HC和HoC等,对反刍动物的干物质采食量和消化率具有重要影响,其中ADF和NDF较难被消化,降低二者含量有利于提高饲料消化率[36]。本试验中,青贮14 d后3个添加剂组ADF和NDF含量均显著高于甜高粱原料,这与Jin等[37]联合使用异常毕赤酵母、戊糖片球菌(Pediococcus pentosaceus)和几丁质酶进行苜蓿青贮后,NDF和ADF含量显著增加的结果相一致。Khota等[38]也发现,在高粱青贮饲料制作过程中添加纤维素酶和乳酸菌并未使NDF和ADF含量显著下降。这可能是因为甜高粱中非结构碳水化合物更容易被微生物代谢利用,而且较高含量的WSC也可能对木质纤维组分的酶解产生一定程度的抑制作用,因此导致纤维组分有所增加[37-38]。当青贮周期延长至21 d时,3个添加剂组ADF和NDF含量出现下降趋势,且显著低于CK组,说明较长时间的青贮过程有利于纤维素酶和异常毕赤酵母发挥作用,促进ADF和NDF组分降解。BDP是衡量青贮饲料可降解特性的重要指标,其值越高代表降解潜力越大;RFV是预测饲料能量价值的指标,其值越高代表营养价值越高,二者也是NDF和ADF含量的综合反映。本试验中,4个组BDP在青贮14 d后均显著高于原料,且在青贮第21天时3个添加剂组RFV均显著高于CK组,尤其PA组和PC组RFV处于较高水平。这说明加入添加剂强化的青贮发酵过程有助于提高甜高粱的生物可降解性,且添加异常毕赤酵母效果更好,这可能源于异常毕赤酵母对细胞壁的降解作用。王祥红[39]认为异常毕赤酵母的嗜杀活性与细胞壁裂解作用有关,其嗜杀因子具有外切β-1,3-D-葡聚糖酶活性,能破坏植物细胞壁,将多糖降解为小分子糖,进而促进木质纤维组分降解。这与试验中WSC、DM、NDF、ADF、CL及HoC等组分的变化趋势相吻合。因此,添加异常毕赤酵母有助于甜高粱青贮的木质纤维组分降解和饲喂价值提高。

3.2 异常毕赤酵母和纤维素酶对甜高粱青贮发酵品质的影响

pH是评判青贮发酵品质的重要指标,反映了青贮饲料的总有机酸水平。一般认为优良青贮的pH处于3.7~4.2[40]。本试验中,4个组pH均在青贮第7天时迅速降低,14 d后低于或趋近最优青贮pH 4.2(3.98~4.24),这与Nkosi等[40]在全株甜高粱中添加纤维素酶和乳酸菌进行青贮后pH低于4.0的结果相类似,也与Borling等[41]报道添加异常毕赤酵母和纤维素酶和乳酸菌进行大麦青贮后pH降至3.8~4.1的结果相近。研究表明,青贮pH的下降主要源于乳酸[酸度系数(pKa)=3.86]和乙酸(pKa=4.75)等有机酸的累积[27]。从青贮启动开始起(0~7 d),甜高粱表面附着的乳酸菌便开始利用WSC进行快速增殖并代谢产生大量乳酸和乙酸,迅速形成低pH青贮环境。当青贮pH<4.2时,体系中梭菌等不良微生物的生命活动几乎停止,部分乳酸菌群也会出现自我抑制现象[42]。与之相比,异常毕赤酵母能在pH为2.0~12.4的环境中正常存活[15],在青贮环境中具有很强的耐受性和竞争优势,进而发挥其独特的生物控制作用,并与乳酸菌群协同调控保持低pH环境[21-22,41]
青贮饲料中的NH3-N主要由植物蛋白酶和微生物降解蛋白质而产生,其含量高低反映了青贮饲料蛋白质的降解程度。一般优质青贮的NH3-N/TN值应低于10%[27]。本试验中,4个组青贮后NH3-N/TN最高值仅为5.47%,均达到优质青贮标准,说明青贮pH的快速下降抑制了植物蛋白酶和需氧微生物的脱氨作用,进而减少了蛋白质分解,有效降低了NH3-N含量,这与Xing等[43]的结论一致。此外,梭菌和肠杆菌被认为是引起NH3-N产生的主要微生物[25],而本试验中均未检测出丁酸,说明体系中不存在梭菌或其活性受到严重抑制,推测肠杆菌是导致NH3-N生成的主要原因之一。研究表明,肠杆菌会与乳酸菌竞争营养底物并分解蛋白质和乳酸,导致NH3-N/TN值和pH升高,损害青贮质量[25]。本试验中,甜高粱青贮微生物群落在属水平上的多样性结果也印证了这一点。
有机酸的构成及其含量是影响青贮发酵品质的重要因素。优质青贮一般含有较多乳酸(>50 g/kg DM,占总有机酸60%以上)和少量乙酸(10~40 g/kg DM),几乎不含丙酸(<9 g/kg DM)和丁酸(<5 g/kg DM)[25,27]。本试验中,4个组LA/TOA值均高于60%,AA含量介于5.07~25.19 g/kg DM,PPA含量<0.50 g/kg DM,未检测到丁酸,均达到优质青贮要求。乙酸和丙酸具有抗真菌活性,对提高青贮有氧稳定性和保存性能具有积极作用[27]。此外,LA/AA值反映了青贮过程的乳酸发酵程度,良好青贮的LA/AA值应大于2。本试验中,4个组LA/AA值均高于2,且随着青贮时间的延长而显著升高,说明甜高粱青贮发酵以同型乳酸发酵为主导,尤其PA组LA含量和LA/AA值在青贮第21天时均达到最高值。结合属水平上微生物群落分析结果,PA组片球菌属、乳杆菌属相对丰度随着青贮时间的延长而显著升高,尤其是片球菌属相对丰度显著高于其他3个组,而明串珠菌属相对丰度较低。片球菌属和乳杆菌属属于同型发酵乳酸菌,耐酸性强,只发酵产生LA,进而对提高LA含量作用显著;明串珠菌属属于异型发酵乳酸菌,是AA的主要代谢者[44],其相对丰度降低可减缓AA积累速率,可见LA/AA值升高是多种微生物群落协同调控的结果。因此,异常毕赤酵母能促进片球菌属和乳杆菌属繁殖代谢,加强同型乳酸发酵进程[22],进而提高青贮发酵品质,这与pH变化趋势一致。

3.3 异常毕赤酵母和纤维素酶对甜高粱青贮微生物多样性的影响

青贮发酵是一个微生物群落动态演变的过程,微生物群落的变化及其代谢产物的生成直接影响青贮品质。研究表明,与青贮发酵相关的乳酸菌群主要有乳杆菌属、片球菌属、乳球菌属(Lactococcus)、肠球菌属、双歧杆菌属、明串珠菌属、魏斯氏菌属和链球菌属(Streptococcus)[44-46],其中同型发酵乳酸菌在青贮初期迅速繁殖启动乳酸发酵,快速产酸并降低体系pH,而后是更耐酸的乳杆菌属和片球菌属大量繁殖并主导发酵过程,进一步促进pH降低并抑制不良微生物生长增殖[42,45-46]。本试验中,甜高粱青贮的乳酸菌群主要包含明串珠菌属、乳杆菌属、片球菌属以及少量魏斯氏菌属,其中CK组和CE组优势乳酸菌始终为明串珠菌属,而PA组和PC组明串珠菌属相对丰度相对较低,但片球菌属和乳杆菌属相对丰度显著升高,这与Olstorpe等[22]添加异常毕赤酵母贮存大麦过程中优势乳酸菌转为戊糖片球菌和副干酪乳杆菌(Lactobacillus paracasei)的结果相同。结合相关学者报道的青贮发酵乳酸菌演替过程[42,45-46],推测添加异常毕赤酵母比纤维素酶更有助于推动甜高粱向青贮成功的方向发展。此外,PA组中还发现有一定丰度的葡糖杆菌属和泛菌属,前者作为常见的产乙酸菌,能在青贮中产生乙酸[47];后者则可发酵产生乙酸、琥珀酸、己二酸和丙酸[48],2种微生物均有助于提高青贮有氧稳定性。这说明添加异常毕赤酵母有助于改善甜高粱青贮的微生物群落结构,促进乳酸菌与其他微生物群落共同形成稳定良好的青贮微生态体系。
研究证实,青贮发酵过程中不同微生物的代谢物之间以及新微生物群落之间均存在相互作用,可通过信号分子、生化环境调节、协同代谢、蛋白质分泌甚至基因转移等多种途径影响微生物群落的生长、代谢、分化以及活性物质和营养物质的生成[49]。异常毕赤酵母能分泌小分子蛋白质或糖蛋白等嗜杀因子以及代谢产生β-葡聚糖酶、外切几丁质酶、植酸酶、淀粉酶和肽酶等多种胞外酶和乙酸乙酯、乙醇等挥发性代谢物,并与乳酸菌群存在一定互利共生机制[21-22,33]。其中,异常毕赤酵母能提供营养因子促进乳酸菌群发酵产酸,乳酸菌群发酵则可为异常毕赤酵母提供能量来源。青贮过程中乳酸菌迅速产生有机酸降低pH,异常毕赤酵母则更好地控制霉菌、肠杆菌等不良微生物生长[50];特别在青贮初始阶段,异常毕赤酵母还可能加快氧气消耗,为乳酸菌创造厌氧环境[51]。因此,尽管PA组乳酸菌总相对丰度较低,但结合常规营养成分和发酵品质分析,该组WSC、CP、ST、LA以及LA/AA值均优于其他3个组,隶属函数法综合分析青贮质量表现最佳。由此可见,单独添加异常毕赤酵母更有助于改善甜高粱的青贮发酵环境,提高青贮质量,这是异常毕赤酵母作用调控、甜高粱自身理化性质变化、体系中微生物群落演替以及代谢产物消长等多方因素相互影响、共同作用的结果。

4 结论

单独添加异常毕赤酵母对甜高粱青贮过程中营养成分保存、木质纤维组分降解、饲喂价值提高以及发酵品质改善均具有积极作用,青贮质量评价综合表现最优。异常毕赤酵母不仅自身具备优良的生物控制作用,还能优化甜高粱青贮过程中的微生物群落结构,增加片球菌属和乳杆菌属等有益乳酸菌群的相对丰度,改善青贮发酵质量,可以作为适用于甜高粱的一种专用青贮添加剂。
[1]
陶莎, 张峭, 张晶. 2021年饲料市场形势、展望和对策建议[J]. 中国畜牧杂志, 2022, 58(5):269-272.

TAO S, ZHANG Q, ZHANG J. The situation,prospect and countermeasures of feed market in 2021[J]. Chinese Journal of Animal Science, 2022, 58(5):269-272. (in Chinese)

[2]
张丹, 王楠, 李超, 等. 甜高粱——一种优质的饲料作物[J]. 生物技术通报, 2019, 35(5):2-8.

DOI

ZHANG D, WANG N, LI C, et al. Sweet sorghum—a high efficient and quality forage crop[J]. Biotechnology Bulletin, 2019, 35(5):2-8. (in Chinese)

DOI

[3]
XIE Q, XU Z H. Sustainable agriculture:from sweet sorghum planting and ensiling to ruminant feeding[J]. Molecular Plant, 2019, 12(5):603-606.

DOI

[4]
韩宇杰, 房义, 钟荣珍, 等. 苜蓿青贮乳酸菌的筛选及应用研究进展[J]. 动物营养学报, 2022, 34(9):5552-5560.

DOI

HAN Y J, FANG Y, ZHONG R Z, et al. Research progress on screening and application of lactic acid bacteria in alfalfa silage[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5552-5560. (in Chinese)

DOI

[5]
DONG M Y, LI Q Q, XU F Q, et al. Effects of microbial inoculants on the fermentation characteristics and microbial communities of sweet sorghum bagasse silage[J]. Scientific Reports, 2020, 10(1):837.

DOI PMID

[6]
SIFEELDEIN A, WANG S, LI J, et al. Phylogenetic identification of lactic acid bacteria isolates and their effects on the fermentation quality of sweet sorghum (Sorghum bicolor) silage[J]. Journal of Applied Microbiology, 2019, 126(3):718-729.

DOI PMID

[7]
THOMAS M E, FOSTER J L, MCCUISTION K C, et al. Nutritive value,fermentation characteristics,and in situ disappearance kinetics of sorghum silage treated with inoculants[J]. Journal of Dairy Science, 2013, 96(11):7120-7131.

DOI

[8]
DUNIERE L, JIN L, SMILEY B, et al. Impact of adding Saccharomyces strains on fermentation,aerobic stability,nutritive value,and select lactobacilli populations in corn silage[J]. Journal of Animal Science, 2015, 93(5):2322-2335.

DOI

[9]
PAPP L A, HORVÁTH E, PELES F, et al. Insight into yeast-mycotoxin relations[J]. Agriculture, 2021, 11(12):1291.

DOI

[10]
NAIR J, XU S W, SMILEY B, et al. Effects of inoculation of corn silage with Lactobacillus spp. or Saccharomyces cerevisiae alone or in combination on silage fermentation characteristics,nutrient digestibility,and growth performance of growing beef cattle[J]. Journal of Animal Science, 2019, 97(12):4974-4986.

DOI

[11]
ZHOU X L, OUYANG Z, ZHANG X L, et al. Effects of a high-dose Saccharomyces cerevisiae inoculum alone or in combination with Lactobacillus plantarum on the nutritional composition and fermentation traits of maize silage[J]. Animal Production Science, 2020, 60(6):833-842.

DOI

[12]
SUNTARA C, CHERDTHONG A, URIYAPONGSON S, et al. Comparison effects of ruminal Crabtree-negative yeasts and Crabtree-positive yeasts for improving ensiled rice straw quality and ruminal digestion using in vitro gas production[J]. Journal of Fungi, 2020, 6(3):109.

DOI

[13]
ZHOU X L, OUYANG Z, ZHANG X L, et al. Sweet corn stalk treated with Saccharomyces cerevisiae alone or in combination with Lactobacillus plantarum:nutritional composition,fermentation traits and aerobic stability[J]. Animals, 2019, 9(9):598.

DOI

[14]
孙怀永. 异常毕赤酵母(Pichia anomala)HN1-2菌株产单细胞蛋白和嗜杀因子的研究[D]. 硕士学位论文. 青岛: 中国海洋大学, 2012.

SUN H Y. Research of simultaneous production of single cell protein and killer toxin by Pichia anomala HN1-2[D]. Master’s Thesis. Qingdao: Ocean University of China, 2012. (in Chinese)

[15]
FREDLUND E, DRUVEFORS U, BOYSEN M E, et al. Physiological characteristics of the biocontrol yeast Pichia anomala J121[J]. FEMS Yeast Research, 2002, 2(3):395-402.

[16]
VOHRA A, KAUR P, SATYANARAYANA T. Production,characteristics and applications of the cell-bound phytase of Pichia anomala[J]. Antonie van Leeuwenhoek, 2011, 99(1):51-55.

DOI

[17]
TAYEL A A, EL-TRAS W F, MOUSSA S H, et al. Antifungal action of Pichia anomala against aflatoxigenic Aspergillus flavus and its application as a feed supplement[J]. Journal of the Science of Food and Agriculture, 2013, 93(13):3259-3263.

DOI

[18]
MA Y J, SUN Z H, ZENG Y, et al. Isolation,identification and function of Pichia anomala AR2016 and its effects on the growth and health of weaned pigs[J]. Animals, 2021, 11(4):1179.

DOI

[19]
SANTOS M C, GOLT C, JOERGER R D, et al. Identification of the major yeasts isolated from high moisture corn and corn silages in the United States using genetic and biochemical methods[J]. Journal of Dairy Science, 2017, 100(2):1151-1160.

DOI PMID

[20]
任海伟, 唐多利, 康宝, 等. 接种异常毕赤酵母对干玉米秸秆与废弃白菜混贮品质的动态影响及微生物群落结构分析[J]. 应用与环境生物学报, 2019, 25(3):710-718.

REN H W, TANG D L, KANG B, et al. Dynamic effects of Pichia anomala inoculation on the mixed storage quality of dry maize straw and cabbage wastes and their microbial communities[J]. Chinese Journal of Applied and Environmental Biology, 2019, 25(3):710-718. (in Chinese)

[21]
OLSTORPE M. Feed grain improvement through biopreservation and bioprocessing:microbial diversity, energy conservation and animal nutrition aspects[D]. Ph.D. Thesis. Uppsala: Swedish University of Agricultural Sciences, 2008.

[22]
OLSTORPE M, BORLING J, SCHNÜRER J, et al. Pichia anomala yeast improves feed hygiene during storage of moist crimped barley grain under Swedish farm conditions[J]. Animal Feed Science and Technology, 2010, 156(1/2):47-56.

DOI

[23]
唐文浩, 张养东, 郑楠, 等. 苜蓿青贮品质评价研究进展[J]. 动物营养学报, 2022, 34(7):4165-4173.

DOI

TANG W H, ZHANG Y D, ZHENG N, et al. Advances in quality evaluation of alfalfa silage[J]. Chinese Journal of Animal Nutrition, 2022, 34(7):4165-4173. (in Chinese)

DOI

[24]
张志恒, 王玉琴, 任国艳, 等. 基于主成分分析和隶属函数分析评价不同添加剂处理的玉米秸秆青贮的发酵品质[J]. 动物营养学报, 2022, 34(4):2677-2688.

DOI

ZHANG Z H, WANG Y Q, REN G Y, et al. Evaluation of fermentation quality of corn straw silage treated with different additives based on principal component analysis and membership function analysis[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2677-2688. (in Chinese)

[25]
FANG D, DONG Z H, WANG D L, et al. Evaluating the fermentation quality and bacterial community of high-moisture whole-plant quinoa silage ensiled with different additives[J]. Journal of Applied Microbiology, 2022, 132(5):3578-3589.

DOI

[26]
董妙音, 王曙阳, 姜伯玲, 等. 添加不同的青贮菌剂对甜高粱青贮品质的影响[J]. 饲料工业, 2016, 37(1):28-31.

DONG M Y, WANG S Y, JIANG B L, et al. Effects of different silage inoculants on silage quality of sweet sorghum silage[J]. Feed Industry, 2016, 37(1):28-31. (in Chinese)

[27]
KUNG L Jr, SHAVER R D, GRANT R J, et al. Silage review:interpretation of chemical,microbial,and organoleptic components of silages[J]. Journal of Dairy Science, 2018, 101(5):4020-4033.

DOI

[28]
BORREANI G, TABACCO E, SCHMIDT R J, et al. Silage review:factors affecting dry matter and quality losses in silages[J]. Journal of Dairy Science, 2018, 101(5):3952-3979.

DOI

[29]
SUN H, CUI X, LI R L, et al. Ensiling process for efficient biogas production from lignocellulosic substrates:methods,mechanisms,and measures[J]. Bioresource Technology, 2021, 342:125928.

DOI

[30]
BRAHMAKSHATRIYA R D, DONKER J D. Five methods for determination of silage dry matter1[J]. Journal of Dairy Science, 1971, 54(10):1470-1474.

DOI

[31]
SCHAFFRATH R, MEINHARDT F, KLASSEN R. Yeast killer toxins:fundamentals and applications[M]//ANKE T,SCHÜFFLER A.Physiology and genetics. Cham: Springer, 2018:87-118.

[32]
OLSTORPE M, PASSOTH V. Pichia anomala in grain biopreservation[J]. Antonie van Leeuwenhoek, 2011, 99(1):57-62.

DOI

[33]
WALKER G M. Pichia anomala:cell physiology and biotechnology relative to other yeasts[J]. Antonie van Leeuwenhoek, 2011, 99(1):25-34.

DOI

[34]
GUO X S, DING W R, HAN J G, et al. Characterization of protein fractions and amino acids in ensiled alfalfa treated with different chemical additives[J]. Animal Feed Science and Technology, 2008, 142(1/2):89-98.

DOI

[35]
BAI J, FRANCO M, DING Z T, et al. Effect of Bacillus amyloliquefaciens and Bacillus subtilis on fermentation,dynamics of bacterial community and their functional shifts of whole-plant corn silage[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):7.

DOI

[36]
OSKOUEIAN E, JAHROMI M F, JAFARI S, et al. Manipulation of rice straw silage fermentation with different types of lactic acid bacteria inoculant affects rumen microbial fermentation characteristics and methane production[J]. Veterinary Sciences, 2021, 8(6):100.

DOI

[37]
JIN L, CHEVAUX E, MCALLISTER T, et al. Impact of Pediococcus pentosaceus and Pichia anomala in combination with chitinase on the preservation of high-moisture alfalfa hay[J]. Grass and Forage Science, 2018, 73(3):610-621.

DOI

[38]
KHOTA W, PHOLSEN S, HIGGS D, et al. Fermentation quality and in vitro methane production of sorghum silage prepared with cellulase and lactic acid bacteria[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(11):1568-1574.

DOI

[39]
王祥红. 海洋嗜杀酵母的筛选、嗜杀因子的纯化及其基因的克隆[D]. 博士学位论文. 青岛: 中国海洋大学, 2007.

WANG X H. Screening for the marine killer yeast against pathogenic yeast in a crab (Portunus trituberculatus),purification of the killer toxin and cloning of the killer toxin gene from the marine killer yeast YF07b[D]. Ph.D.Thesis. Qingdao: Ocean University of China, 2007. (in Chinese)

[40]
NKOSI B D, VADLANI P V, BRIJWANI K, et al. Effects of bacterial inoculants and an enzyme on the fermentation quality and aerobic stability of ensiled whole-crop sweet sorghum[J]. South African Journal of Animal Science, 2012, 42(3):232-240.

[41]
BORLING W J, LYBERG K, PASSOTH V, et al. Combined moist airtight storage and feed fermentation of barley by the yeast Wickerhamomyces anomalus and a lactic acid bacteria consortium[J]. Frontiers in Plant Science, 2015, 6:270.

[42]
WEINBERG Z G. Preservation of forage crops by solid-state lactic acid fermentation-ensiling[M]//PANDEY A,SOCCOL C R,LARROCHE C. Current developments in solid-state fermentation. New York: Springer, 2008:443-467.

[43]
XING L, CHEN L J, HAN L J. The effect of an inoculant and enzymes on fermentation and nutritive value of sorghum straw silages[J]. Bioresource Technology, 2009, 100(1):488-491.

DOI PMID

[44]
SOUNDHARRAJAN I, PARK H S, RENGASAMY S, et al. Application and future prospective of lactic acid bacteria as natural additives for silage production-a review[J]. Applied Sciences, 2021, 11(17):8127.

DOI

[45]
DUNIÈRE L, SINDOU J, CHAUCHEYRAS-DURAND F, et al. Silage processing and strategies to prevent persistence of undesirable microorganisms[J]. Animal Feed Science and Technology, 2013, 182(1/2/3/4):1-15.

DOI

[46]
ALHAAG H, YUAN X J, MALA A, et al. Fermentation characteristics of Lactobacillus plantarum and Pediococcus species isolated from sweet sorghum silage and their application as silage inoculants[J]. Applied Sciences, 2019, 9(6):1247.

DOI

[47]
DE MUYNCK C, PEREIRA C S S, NAESSENS M, et al. The genus Gluconobacter oxydans:comprehensive overview of biochemistry and biotechnological applications[J]. Critical Reviews in Biotechnology, 2007, 27(3):147-171.

DOI

[48]
JACXSENS L, DEVLIEGHERE F, RAGAERT P, et al. Relation between microbiological quality,metabolite production and sensory quality of equilibrium modified atmosphere packaged fresh-cut produce[J]. International Journal of Food Microbiology, 2003, 83(3):263-280.

DOI

[49]
崔艺燕, 王超普, 邓盾, 等. 不同菌种有氧发酵对柑橘渣营养价值的影响[J]. 动物营养学报, 2022, 34(3):2030-2040.

DOI

CUI Y Y, WANG C P, DENG D, et al. Effects of aerobic fermentation with different strains on nutritional value of citrus pomace[J]. Chinese Journal of Animal Nutrition, 2022, 34(3):2030-2040. (in Chinese)

[50]
SCHNÜRER J, JONSSON A. Pichia anomala J121:a 30-year overnight near success biopreservation story[J]. Antonie van Leeuwenhoek, 2011, 99(1):5-12.

DOI

[51]
GONDA M, GARMENDIA G, RUFO C, et al. Biocontrol of Aspergillus flavus in ensiled sorghum by water kefir microorganisms[J]. Microorganisms, 2019, 7(8):253.

DOI

文章导航

/