综述

微生物群落定植规律及其对产蛋鸡内分泌和生殖健康的影响

  • 王庆凤 ,
  • 米金秋 ,
  • 马秋刚 ,
  • 黄世猛 , *
展开
  • 中国农业大学动物科学技术学院,动物营养学国家重点实验室,北京 100193
* 黄世猛,副教授,硕士生导师,E-mail:

王庆凤(1999—),女,四川茂县人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 田艳明

收稿日期: 2022-12-09

  网络出版日期: 2023-07-11

基金资助

国家蛋鸡产业技术体系(CARS-40-K08)

Effects of Microbial Community Colonization on Endocrine and Reproductive Health of Laying Hens

  • WANG Qingfeng ,
  • MI Jinqiu ,
  • MA Qiugang ,
  • HUANG Shimeng , *
Expand
  • State Key Laboratory of Animal Nutrition, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
* associate professor, E-mail:

Received date: 2022-12-09

  Online published: 2023-07-11

摘要

消化道和生殖道微生物群落对饲粮营养物质的消化和代谢过程、动物生长发育、免疫功能成熟以及内分泌和生殖系统健康等具有重要作用。蛋鸡消化道和生殖道内寄居着数量庞大且种类丰富的微生物,这些微生物参与了维持宿主内环境的稳态。微生物群落演替集合了随机性过程和确定性过程的平衡,当前对产蛋鸡消化道和生殖道微生物群落稳态及其在宿主内分泌和生殖系统中的作用认识仍不够全面和深入。本文综述了产蛋鸡消化道和生殖道微生物群落的组成和功能,及其对宿主内分泌和生殖系统的影响,旨在为寻找应用精准营养干预调控微生物群落共生网络,实现蛋鸡内分泌和生殖系统的健康以及营养物质的高效利用提供参考。

本文引用格式

王庆凤 , 米金秋 , 马秋刚 , 黄世猛 . 微生物群落定植规律及其对产蛋鸡内分泌和生殖健康的影响[J]. 动物营养学报, 2023 , 35(7) : 4148 -4158 . DOI: 10.12418/CJAN2023.384

Abstract

Microbial community in digestive tract and reproductive tract plays an important role in digestive and metabolic processes of dietary nutrients, animal growth and development, immune maturation and endocrine and reproductive system health. A large number and rich variety of microorganisms reside in the digestive tract and reproductive tract of laying hens, which are involved in maintaining the homeostasis of the host environment. Microbial community succession integrates the balance of stochastic and deterministic processes. The understanding of microbial community homeostasis in digestive tract and reproductive tract of laying hens and its role in host endocrine and reproductive system is still not comprehensive and thorough. In this paper, the composition and function of the microbial community in digestive tract and reproductive tract of laying hens and its effects on endocrine and reproductive systems of the host were reviewed, aiming to provide reference for the application of precision nutrition intervention to regulate the symbiotic network of microbial communities, and to achieve the health of the endocrine and reproductive systems of laying hens and the efficient use of nutrients.

肠道微生物群落为定居于宿主的细菌、真菌、古细菌、病毒和原生动物等微生物的集合[1]。人和动物身体各处都存在微生物,皮肤表面、消化道、呼吸道和生殖道等均黏附或寄居着微生物,其中90%以上的微生物都寄居在肠道[2-4],这些微生物统称为共生微生物[1]。越来越多的研究表明,微生物存在于宿主整个生命周期。Hooper等[5]和Ruff等[6]研究发现,微生物之间通过影响机体免疫和内分泌细胞等来建立宿主-微生物的相互作用,帮助宿主维持内环境稳态。因此,稳定的微生物群落对于维持免疫、内分泌和神经系统的正常功能,代谢循环以及生殖系统的健康至关重要[1,7-9]。Hullar等[10]研究表明,微生物群落的组成和功能变化会导致宿主表观遗传学修饰、体内生理过程和基因表达的改变。肠道菌群失调导致宿主代谢紊乱、免疫失调、炎症反应和氧化应激,进而损伤生殖系统,增加疾病易感性,从而对生殖能力和妊娠产生不利影响[5,9-16]。例如,Qi等[13]和Chen等[14]研究阐明了肠道和生殖道微生物与宿主雌激素、雄激素和胰岛素等的相互作用,如肠道微生物紊乱时,会引起多囊卵巢综合征,导致子宫内膜异位症等生殖内分泌疾病的发生、发展及转移。因此,维持消化道和生殖道微生物群落稳态能保护宿主免受病原体侵害,改善机体内分泌代谢和提高生殖潜力,并减少生殖相关疾病的发生。此外,随着微生物研究手段的丰富,菌群及其次级代谢产物对宿主肠道和生殖道健康的直接或间接作用研究已成为热点。因此,本文综述了产蛋鸡消化道(嗉囊、肌胃、十二指肠、空肠、回肠、盲肠、结肠、泄殖腔和粪便)和生殖道(漏斗部、膨大部、峡部、子宫和阴道)微生物群落的定植规律,并对稳态失调引起的内分泌和生殖相关疾病进行系统总结和归纳,深入解析了微生物群落的作用及其与宿主内分泌之间的互作规律,旨在为提高产蛋鸡生产性能和蛋品质提供参考,并且为精准调控蛋鸡微生物群落提供理论依据,助力实现蛋鸡绿色健康高效养殖。

1 产蛋鸡消化道和生殖道微生物群落

蛋鸡消化道和生殖道内寄居着数量庞大且复杂多样的微生物,菌群参与宿主的正常生理代谢与发育过程,微生物群落的稳态不仅关系着宿主的饲粮营养物质的消化吸收和能量平衡,而且影响着宿主正常的生理代谢功能与疾病的发生和发展[15-16]。基于因果推理和相互作用等方法解析其消化道和生殖道微生物群落的互作网络,并借助微生物的相互作用建立动态干预模式,相关内容受到学术界和产业界的广泛关注。Ricke等[17]、Huang等[18]和Park等[19]研究发现,肠道菌群对提高蛋鸡对营养物质的消化吸收、肠道屏障功能、生产性能和蛋品质起着至关重要的作用,而饲粮、日龄、环境和宿主遗传是蛋鸡肠道微生物群落变化的主要驱动力,但是目前对于产蛋鸡消化道和生殖道微生物群落的系统研究较为缺乏,有待进一步探索。同时,Qi等[13]和Azziz等[20]研究发现,微生物可以产生和分泌激素,而微生物与激素互作会影响宿主的新陈代谢、免疫应答和神经调控,菌群紊乱对生殖内分泌系统有着不可估量的影响。因此,系统解析蛋鸡微生物群落不同生态位的演替规律,全面认识蛋鸡消化道和生殖道微生物的功能基因,是建立调控微生物群落共生网络、靶向调节宿主内分泌、促进生殖健康和营养物质高效利用营养干预体系的关键。

2 产蛋鸡消化道微生物群落的组成和功能

2.1 产蛋鸡消化道微生物群落的分布
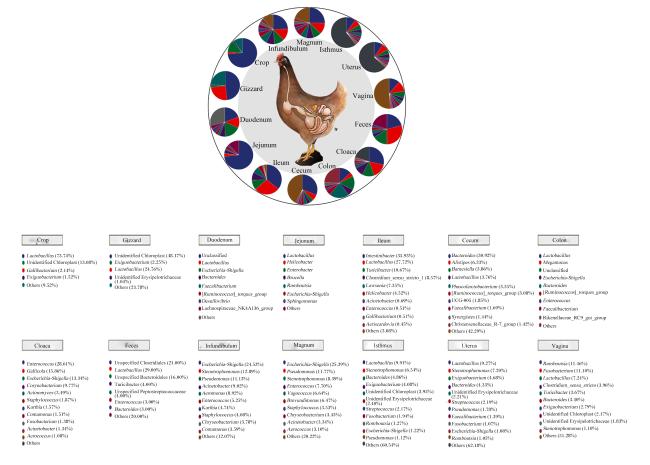
蛋鸡消化道不同部位的酸碱度、氧化还原电位、氧气浓度、营养底物以及宿主和微生物代谢产物等均会影响微生物分区定植效率,最终造成蛋鸡不同消化道段落微生物群落存在明显差异化定植[16]。其中,蛋鸡嗉囊、腺胃和肌胃的pH均在5以下,十二指肠、空肠、回肠、盲肠和结肠的pH均在6以上,酸碱度的不同影响着消化道不同部位优势菌群的组成和多样性[6,21-22]。此外,蛋鸡消化道不同段落的微生物群落是一个持续变化、保持动态平衡的结构,当前国内外大部分关于家禽消化道微生物群落定植规律的研究以肉鸡为研究对象,而产蛋鸡消化道不同段落微生物群落变化的研究不够全面。因此,本文综述了近些年来成年蛋鸡消化道微生物群落定植规律的研究结果(图1表1)。
图1 蛋鸡消化道和生殖道微生物群落组成

Crop:嗉囊;Gizzard:肌胃;Duodenum:十二指肠;Jejunum:空肠;Ileum:回肠;Cecum:盲肠;Colon:结肠;Cloaca:泄殖腔;Feces:粪便;Infundibulum:漏斗部;Magnum:膨大部;Isthmus:峡部;Uterus:子宫;Vagina:阴道。

Lactobacillus:乳杆菌属;Unidentified Chloroplast:未鉴别的叶绿体属;Gallibacterium:鸡杆菌属;Exiguobacterium:微小杆菌属;Unidentified Erysipelotrichaceae:未鉴别的丹毒丝菌科;Unclassified:未分类属;Escherichia-Shigella:埃希氏-志贺氏菌属;Bacteroides:拟杆菌属;Faecalibacterium:粪杆菌属;[Ruminococcus]_torques_group:瘤胃球菌属扭矩群;Desulfovibrio:脱硫弧菌属;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Helicobacter:螺杆菌属;Enterobacter:肠杆菌属;Brucella:布鲁氏菌属;Romboutsia:罗姆布茨菌属;Sphingomonas:鞘氨醇单胞菌属;Intestinibacter:肠杆菌属;Turicibacter:苏黎世杆菌属;Clostridium_sensu_stricto_1:狭义梭菌属1;Lawsonia:劳森菌属;Acinetobacter:不动杆菌属;Enterococcus:肠球菌属;Aeriscardovia:卡多维亚氏菌属;Alistipes:另枝菌属;Barnesiella:巴恩斯氏菌属;Phascolarctobacterium:考拉杆菌属;Synergistes:互养菌属;Christensenellaceae_R-7_group:克里斯滕森菌科R-7群;Megamonas:巨单胞菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Gallicola:叶瘿菌属;Corynebacterium:棒杆菌属;Actinomyces:放线菌属;Staphylococcus:葡萄球菌属;Kurthia:库特氏菌属;Comamonas:丛毛单胞菌属;Fusobacterium:梭杆菌属;Aerococcus:气球菌属;Unspecified Clostridiales:未指明的梭菌目;Unspecified Bacteroidales:未指明的拟杆菌目;Unspecified Peptostreptococcaceae:未指明的消化链球菌科;Stenotrophomonas:寡养单胞菌属;Pseudomonas:假单胞菌属;Aeromonas:气单胞菌属;Chryseobacterium:金黄杆菌属;Vagococcus:漫游球菌属;Brevundimonas:短波单胞菌属;Clostridium_sensu_stricto:狭义梭菌属;Others:其他。

括号内数值为所占比例。The value in parentheses was the proportion.

Fig.1 Microbial community composition of digestive tract and reproductive tract of laying hens

表1 蛋鸡消化道微生物群落组成

Table 1 Microbial community composition of digestive tract of laying hens

试验动物
Experimental animals
日龄
Days of age
部位
Site
pH 发现
Finding
参考文献
References
东乡绿壳蛋鸡
Dongxiang green shell
laying hens
300 嗉囊 4.8[13] 乳杆菌属73.74%,鸡杆菌属2.14%,
微小杆菌属1.52%
Su等[23]
肌胃 3.5[13] 乳杆菌属24.76%,微小杆菌属2.25%
罗曼粉蛋鸡
Roman pink laying hens
510 十二指肠 6.0[13] 埃希氏-志贺氏菌属、乳杆菌属、拟杆菌属、
脱硫孤菌属和粪杆菌属等
宋滢[33]
空肠 6.0[13] 乳杆菌属、布鲁氏菌属、螺杆菌属、埃希氏-
志贺氏菌属、鞘氨醇单胞菌属、罗姆
布茨菌属和肠杆菌属等
海兰褐蛋鸡
Hy-Line brown laying hens
357
(51周龄)
回肠 6.0[13] 肠杆菌属35.93%,乳杆菌属27.72%,
苏黎世杆菌属10.67%,狭义梭菌属
1 8.57%,螺杆菌属4.52%
Zhen等[34]
京红蛋鸡
Jinghong laying hens
357
(51周龄)
盲肠 6.3[13] 拟杆菌属30.92%,另枝菌属6.33%,
巴恩斯氏菌属3.86%,乳杆菌属
3.76%,考拉杆菌属3.35%
Huang等[18]
罗曼粉蛋鸡
Roman pink laying hens
510 结肠 7.0[13] 拟杆菌属、乳酸杆菌属、巨单胞菌属、
埃希氏-志贺氏菌属胃瘤球菌属扭矩群、
肠球菌属、粪杆菌属和理研菌科RC9
肠道群等
宋滢[33]
洛岛红蛋鸡
Rhode island red laying hens
630
(90周龄)
泄殖腔 肠球菌属28.61%,埃希氏-志贺氏菌属
13.34%,棒杆菌属9.77%,放线菌属3.49%,
葡萄球菌属1.87%
Wen等[15]
海兰褐蛋鸡
Hy-Line brown laying hens
357
(51周龄)
粪便 乳杆菌属29.00%,苏黎世杆菌属4.00%,
肠球菌属3.00%,拟杆菌属3.00%
刘继泽等[40]
Su等[23]研究表明,300日龄的东乡绿壳蛋鸡嗉囊微生物群落中乳杆菌属(Lactobacillus)占73.74%,未鉴别的叶绿体属(unidentified Chloroplast)占13.08%,鸡杆菌属(Gallibacterium)占2.14%,微小杆菌属(Exiguobacterium)占1.52%。前期大量研究表明,乳酸杆菌作为鸡肠道菌群的重要组成,有助于维持宿主微生态平衡[24]。Watkins等[25]研究发现,乳酸杆菌主要定植于鸡的嗉囊、回肠和盲肠。Beasley等[26]研究表明,鸡前肠段乳酸杆菌主要包括唾液乳杆菌(Lactobacillus salivarius)、罗伊氏乳杆菌(Lactobacillus reuteri)和嗜酸乳杆菌(Lactobacillus acidophilus)。Classen等[27]研究发现,家禽的嗉囊不仅可以通过软化食糜和微生物分泌消化酶对饲粮进行初步消化,而且以乳酸杆菌为主的嗉囊还具有良好的适应性和先天免疫功能,能够抵抗病原微生物侵染。定植于嗉囊的乳酸杆菌通过分泌大量酸性物质[乳酸和短链脂肪酸(SCFAs)],将嗉囊pH维持于4.5~6.0,从而有助于提升饲粮营养物质的消化吸收。同时,Jin等[28]研究发现,从鸡肠道中分离的12株乳酸杆菌可以通过分泌乳酸等代谢物抑制消化道内的大肠杆菌(Escherichia coli)和沙门氏菌(Salmonella)定植。由此,De Cesare等[29]研究发现,饮水中添加适量嗜酸乳杆菌D2/CSL(CECT 4529)能够显著改善鸡嗉囊和盲肠微生物的组成和功能基因。Su等[23]研究发现,300日龄的东乡绿壳蛋鸡肌胃中未鉴别的叶绿体属占48.17%,乳杆菌属占24.76%,微小杆菌属占2.25%,未鉴别的丹毒丝菌科(unidentified Erysipelotrichaceae)占1.04%。近年来研究发现,乳酸杆菌属于肠道优势菌群,乳酸杆菌发酵能够产生大量酸性物质,与宿主分泌的代谢产物共同维持肌胃的酸性环境[30],有利于激活胃蛋白酶原,活化胃蛋白酶,促进蛋白质的消化和吸收[31-32]。宋滢[33]研究发现,510日龄的罗曼粉蛋鸡十二指肠微生物群落主要由埃希氏-志贺氏菌属(Escherichia-Shigella)、乳杆菌属、拟杆菌属(Bacteroides)、脱硫孤菌属(Desulfovibrio)、粪杆菌属(Faecalibacterium)、瘤胃球菌属扭矩群([Ruminococcus]_torques_group)、毛螺菌科NK4A136群(Lachnospiraceae_NK4A136_group)等组成,空肠微生物群落主要由乳杆菌属、布鲁氏菌属(Brucella)、螺杆菌属(Helicobacter)、埃希氏-志贺氏菌属、鞘氨醇单胞菌属(Sphingomonas)、罗姆布茨菌属(Romboutsia)和肠杆菌属(Enterobacter)等组成。在蛋鸡空肠微生物中乳杆菌属为优势菌属,参与宿主的营养物质消化吸收、氨基酸代谢、能量代谢、免疫调节、菌群感应和胃肠蠕动等过程[17]。Zhen等[34]研究发现,51周海兰褐蛋鸡回肠中肠杆菌属(Intestinibacter)占35.93%,乳杆菌属占27.72%,苏黎世杆菌属(Turicibacter)占10.67%,狭义梭菌属1(Clostridium_sensu_stricto_1)占8.57%,螺杆菌属占4.52%,不动杆菌属(Acinetobacter)占0.69%,肠球菌属(Enterococcus)占0.51%,鸡杆菌属占0.51%,卡多维亚氏菌属(Aeriscardovia)占0.45%。从上述研究结果可以看出,成年蛋鸡的十二指肠、空肠和回肠食糜中微生物区系组成相似。回肠是蛋鸡消化道微生物研究最多的部位之一,回肠作为营养物质消化和吸收的主要部位,其中乳杆菌属和狭义梭菌属(Clostridium_sensu_stricto)参与宿主营养代谢和黏膜免疫(表1)[31]。Huang等[18]研究发现,51周龄京红蛋鸡盲肠中拟杆菌属占30.92%,另枝菌属(Alistipes)占6.33%,巴恩斯氏菌属(Barnesiella)占3.86%,乳杆菌属占3.76%,考拉杆菌属(Phascolarctobacterium)占3.35%,胃瘤球菌属扭矩群([Ruminococcus]_torques_group)占3.35%,UCG-005占1.85%,粪杆菌属占1.69%,互养菌属(Synergistes)占1.44%,克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)占1.42%。蛋鸡盲肠位于小肠后段和大肠交接处,有2条伸向2侧的盲管分支,与肠道蠕动活跃的小肠相比,盲肠运动节律较低,黏稠的半液态食糜在缓慢节律蠕动中发酵,被盲肠中丰富的微生物发酵利用[35]。盲肠中定植了绝对数量最多和种类最丰富的微生物,且主要由厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidetes)组成。Rychlik[24]研究表明,成年蛋鸡盲肠菌群中厚壁菌门和拟杆菌门的数量相近,各占总菌丰度的45%。Gong等[36]研究发现,在肉鸡肠道中含有大量的具有多糖和寡糖降解酶编码基因的厚壁菌门和拟杆菌门,并通过表达和分泌L-岩藻糖异构酶和木糖异构酶,降解肉鸡本身不可消化的碳水化合物,产生大量乳酸、丙酸、丁酸和细菌素等,进而调控宿主机体物质代谢、营养物质转化与合成及胆汁酸代谢,并且作为肠道上皮细胞能量底物,促进肠道上皮黏液合成和分泌[17,34-39]。宋滢[33]研究发现,510日龄的罗曼粉蛋鸡结肠微生物群落主要由拟杆菌属、乳杆菌属、巨单胞菌属(Megamonas)、埃希氏-志贺氏菌属、胃瘤球菌属扭矩群、肠球菌属、粪杆菌属和理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)等组成。Wen等[15]研究发现,90周洛岛红纯系蛋鸡泄殖腔中肠球菌属占28.61%,埃希氏-志贺氏菌属占13.34%,棒杆菌属(Corynebacterium)占9.77%,放线菌属(Actinomyces)占3.49%,葡萄球菌属(Staphylococcus)占1.87%,库特氏菌属(Kurthia)占1.57%,丛毛单胞菌属(Comamonas)占1.51%,梭杆菌属(Fusobacterium)占1.38%,不动杆菌属占1.34%,气球菌属(Aerococcus)占1.08%。刘继泽[40]研究发现,51周海兰褐蛋鸡粪便中未指明的梭菌目(unspecified Clostridiales)占21.00%,乳杆菌属占29.00%,未指明的拟杆菌目(unspecified Bacteroidales)占16.00%,苏黎世杆菌属占4.00%,未指明的消化链球菌科(unspecified Peptostreptococcaceae)占4.00%,肠球菌属占3.00%,拟杆菌属占3.00%。前人研究发现,蛋鸡肠道菌群稳态直接影响宿主的营养代谢、免疫调控和健康,不同肠段的微生物群落演替对于蛋鸡的健康尤为重要,微生物多样性动态演替与宿主生长发育、肠道疾病息息相关[16]
综上所述,尽管上述研究结果来源于不同日龄和不同品种成年蛋鸡生物样品,但结果表明蛋鸡消化道微生物群落呈现特定的分区定植规律,其中前肠段主要由乳杆菌属组成,随着后肠pH的变化,食糜微生物主要由拟杆菌属和肠球菌属等组成。

2.2 消化道微生物对产蛋鸡内分泌的影响

肠道微生物与宿主互作是当前研究热点之一,蛋鸡卵泡的发育编程和繁殖性能主要通过下丘脑的促性腺激素释放激素、垂体的促黄体生成素和促卵泡激素以及性腺的雌激素调节[17]。Elokil等[41]研究发现,不同生产性能蛋鸡的肠道菌群定植规律存在显著差异。Wang等[42]研究发现,以高产蛋鸡的粪便微生物作为供体,通过粪菌移植传递给受体低产蛋鸡,可显著改善受体低产蛋鸡的生产性能。Liu等[43]研究发现,饲粮中补充中链α-甘油单酯可以促进肠道微生物丰度和血清促卵泡激素、黄体生成素和雌二醇含量的提高,表明微生物和激素共同调节了蛋鸡的生产性能[17]。Derbyshire等[44]研究发现,肠道微生物及其代谢物,如SCFAs、胆汁酸和吲哚衍生物,通过肠内分泌细胞和肠染色质细胞发出信号,调节神经肽的分泌。此外,它们可以直接与肠道迷走神经建立联系,调节氨基丁酸和5-羟色胺等神经递质[45]。Gaub等[46]研究表明,下丘脑通过改变雌二醇的分泌来调节输卵管壶腹部和峡部的蛋白质分泌,调控鸡蛋中蛋白质的形成,由此可见,脑-生殖道轴调节蛋鸡的输卵管健康。
SCFAs主要是微生物利用不可消化碳水化合物发酵产生的次级代谢产物,主要包括乙酸、丙酸、丁酸和乳酸[47]。SCFAs可通过促进肠道上皮细胞的增殖和分化,提高宿主肠道绒毛高度和增加绒毛吸收表面积来改善机体对营养物质的消化、吸收和利用[48]。Al-Batshan等[49]研究表明,蛋鸡肠道钙利用率下降是产蛋后期蛋壳质量下降的主要原因,而SCFAs有利于钙的吸收,增加蛋壳中钙沉积,提高蛋壳厚度。Feng等[50]研究发现,饲粮添加香精油可增强产蛋后期蛋鸡的消化酶活性,提高益生菌丰度,改善肠道形态和屏障功能,增加营养物质吸收表面积,有利于提升蛋鸡饲料转化率和蛋壳品质。Zaiss等[51]研究发现,SCFAs可与G蛋白偶联受体43(GPR43)结合,促进辅助CD4+细胞向调节性T细胞(Treg)分化,激活骨髓基质细胞中的Wnt信号,促进其增殖分化为成骨细胞。Gultemirian等[52]研究发现,SCFAs能够降低宿主肠腔的pH并提高钙的溶解度,从而进一步提高蛋鸡对钙的利用率。因此,肠道菌群及其代谢产物SCFAs能促进蛋鸡钙吸收和骨形成,改善骨代谢稳态,提高蛋壳品质,对延长产蛋期具有重要意义。

3 产蛋鸡生殖道微生物群落的组成和功能

3.1 产蛋鸡生殖道微生物群落分布

生殖道微生物是近些年微生物研究领域的热点。大量研究表明,蛋鸡生殖道生理结构、微生物群落和神经体液调节等共同组成生殖道微环境,形成一道天然的生物防御网络,以此抵御外来致病菌的侵袭[23,53]。在正常生理情况下,生殖道微生物与宿主之间达成一种相互协调、相互制约的动态平衡,在阴道中会建立以优势菌属为代表的微生态环境;然而,对于产蛋鸡输卵管的微生物群落及其与宿主共生关系的解析还没有很好的描述。因此,Su等[23]和Wen等[15]分别对300日龄东乡绿壳蛋鸡和630日龄洛岛红蛋鸡生殖道中不同部位(漏斗部、膨大部、峡部、子宫和阴道)微生物群落的演替规律和功能进行了研究(表2),结果如上所述,由这些研究结果可知,蛋鸡生殖道不同部位微生物存着在明显差异,其中峡部、子宫和阴道的优势菌群以乳酸杆菌为主,这提示健康蛋鸡生殖道的乳酸杆菌对于维持生殖道健康具有重要意义,其可以通过产生乳酸和细菌素等抑制病原菌定植,改善生态失调,维持内环境稳态,降低疾病风险。然而,受长期高强度生产和环境变化等因素的影响,病原菌会以蛋鸡泄殖腔为突破口逆行侵入生殖道,进而导致生殖道微生物群落紊乱,生殖道清洁度降低,酸碱平衡得到破坏,黏液分泌受阻,引起外源有害微生物侵入及内源性致病细菌大量增殖,最终引起生殖道感染[15]。因此,需要建立以乳酸杆菌为主的生殖道微生物群落,阐明乳酸杆菌缓解生殖道炎症、病毒感染和阴道念珠菌病等疾病的分子机制,为解析生殖道微生物群落影响蛋鸡健康提供理论依据。
表2 蛋鸡生殖道微生物的组成

Table 2 Composition of reproductive tract microbiota of laying hens

试验动物
Experimental animals
日龄
Days of age
部位
Site
发现
Finding
参考文献
References
洛岛红蛋鸡
Rhode island red laying hens
630
(90周龄)
漏斗部 埃希氏-志贺氏菌属24.53%,寡养单胞菌
属12.89%,假单胞菌属12.89%,
不动杆菌属9.02%,气单胞菌属8.92%
Wen等[15]
膨大部 假单胞
菌属11.77%,寡养单胞菌属8.39%
肠球菌属7.70%,漫游球菌属6.64%
东乡绿壳蛋鸡
Dongxiang
green shell laying hens
300 峡部 乳杆菌属9.91%,寡养单胞菌属6.54%,
拟杆菌属4.86%,微小杆菌属4.08%,
链球菌属(Streptococcus)2.17%
Su等[23]
子宫 乳杆菌属9.27%,寡养单胞菌属7.20%
微小杆菌属4.08%,拟杆菌属4.86%
链球菌属2.19%
阴道 罗姆布茨菌属1.05%,梭杆菌属1.07%
乳杆菌属7.24%,狭义梭菌属3.96%
苏黎世杆菌属3.67%

3.2 生殖道微生物对产蛋鸡内分泌和生殖的影响

作为生殖道系统的重要组成部分,微生物是维持宿主生殖道健康的关键,在新陈代谢、体内稳态、细胞增殖、凋亡、炎症、氧化/抗氧化以及生殖中发挥着重要的生理作用[13,54]。Lee等[55]研究发现,鸡输卵管的胚胎和蛋清之间的微生物组成相似性较高,提示母体输卵管微生物群由蛋清转移到胚胎。这与哺乳动物母子微生物传递的规律相类似,即胎儿最初在子宫内从胎盘定殖微生物群,而且微生物可通过鸡蛋垂直传播到胚胎,构成鸡的初始肠道菌群。Réhault-Godbert等[56]研究发现,在雌性生殖道内卵子形成过程中,菌群可以直接进入蛋黄、蛋清、蛋壳膜和蛋壳。由此可见,输卵管微生物群落稳态在鸡蛋形成过程中发挥重要作用,是提高鸡蛋品质的关键[17]。Shi等[57]和Wang等[58]研究发现,子宫中的蛋白质或代谢物参与蛋壳钙化过程,影响蛋壳质量。此外,生殖道微生物对卵子形成过程产生重要影响,细菌的过度生长是导致蛋鸡输卵管炎症的主要病因,会造成产蛋量和蛋品质降低。禽蛋是人类的主要营养物质来源之一,它们被微生物污染会导致腐败和病原体传播,导致消费者的食源性感染,造成巨大社会风险和经济损失。因此,生殖道微生物群落稳态对于产蛋鸡健康生产和蛋品质至关重要。
此外,输卵管还为鸡卵生提供了生物环境,微环境中的微生物在卵细胞形成过程中,一些细菌能直接沉积在蛋黄、蛋白、蛋壳膜和蛋壳中[35]。Wen等[15]研究发现,阴道中葡萄球菌属和拉尔斯顿菌属(Ralstonia)的丰度较高,且与蛋壳的深褐色显著相关。Samiullah等[59]研究证实,鸡蛋中大部分(80%~87%)色素位于蛋壳的钙质部分,小部分(13%~20%)位于角质层内。De La Fuente等[60]研究发现,葡萄球菌存在于鸡生殖道的各个部位,且相邻位点的葡萄球菌丰度有显著差异,且生殖道的葡萄球菌具有较强的卟啉类和吡咯类色素生物合成能力。Sparks[61]研究发现,在蛋壳形成过程中,色素从子宫上皮分泌到子宫液中,从而进入蛋壳。Agostinis等[62]研究表明,输卵管微生物也参与蛋壳色素的合成和沉积,阴道中的葡萄球菌可能影响蛋壳角质层色素的含量,通过对蛋壳颜色相关细菌的成功鉴定,证明了特定菌群对鸡蛋产量的影响。上述结果说明,微生物参与宿主蛋壳颜色沉积,然而何种微生物通过何种途径影响色素合成和沉积仍需进一步研究。
微生物能通过模式识别受体激活巨噬细胞和树突状细胞等免疫细胞[54],进而参与子宫内膜的先天和适应性免疫反应[62-63],维持宿主抗炎和促炎细胞因子的动态平衡,最终使得宿主黏膜微环境处于平衡[63-64]。Dai等[63]研究发现,蛋壳矿化过程中子宫黏膜的促炎细胞因子白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)和趋化因子C-X3-C基序趋化因子配体1(CX3CL1)表达上调。同时,Yoshimura等[65]研究表明,当被致病菌或某些革兰氏阴性菌攻击时,输卵管组织的先天免疫系统通过Toll样受体识别微生物的相关分子,包括来自微生物细胞壁肽聚糖和细胞膜脂多糖的分子,并通过激活转录因子核因子-κB(NF-κB)和激活蛋白-1(AP-1),促进IL-1β和IL-6的合成,导致子宫黏膜中抗炎因子和促炎细胞因子之间的失衡。Nii等[66]研究发现,IL-1β和IL-6通过抑制蛋鸡输卵管子宫部黏膜中钙结合蛋白的表达和钙离子(Ca2+)的运输影响蛋壳超微结构。Narsale等[67]推测,可能由于IL-1β和IL-6在促进造血和蛋白质降解方面发挥了关键作用,因此干扰了蛋壳矿化过程中基质蛋白的形成和无机离子的供应效率。此外,Feng等[68]研究发现,老年蛋鸡输卵管子宫部内有机基质蛋白合成紊乱和免疫功能受损是导致蛋壳超微结构和力学性能变化的主要原因,且后者可能是蛋鸡后期生产蛋壳质量下降的主要原因。由此可见,输卵管微生物介导的黏膜免疫应答对蛋品质存在潜在影响,通过调控产蛋鸡输卵管微生物可一定程度改善蛋壳质量,相关作用机制有待进一步研究。
综上所述,蛋鸡生殖道微生物一方面通过维持和改善宿主黏膜免疫平衡,另一方面通过促进蛋鸡输卵管上皮细胞的增殖、分化和更新以及提升内分泌细胞功能,从而调控营养物质的消化和吸收,增强蛋鸡输卵管黏膜屏障功能,进而维持蛋鸡生殖道健康稳态。

4 小结与展望

消化道和生殖道菌群在调节蛋鸡免疫应答、营养物质消化、SCFAs产生、维生素合成、肠道屏障功能完整性、生长发育和繁殖性能等方面具有重要作用。然而,蛋鸡消化道和生殖道微生物群落生态演替和功能受多种因素影响,当前缺乏较为系统的全生产周期蛋鸡消化道和生殖道微生物群落定植规律的研究。因此,需进一步研究并寻找以菌群作为蛋鸡内分泌和生殖相关疾病的生物标记,建立精准调控蛋鸡肠道和生殖道微生物的措施,从而改善机体代谢内分泌和繁殖性能。未来,基于因果分析、多组学关联分析和菌群网络重构,探索益生菌精准干预蛋鸡代谢性疾病和生殖道炎症损伤的作用机制,对保障“超长产蛋期”蛋鸡肠道-生殖道健康具有重要指导意义。
[1]
RICHARD M L, SOKOL H. The gut mycobiota:insights into analysis,environmental interactions and role in gastrointestinal diseases[J]. Nature Reviews Gastroenterology & Hepatology, 2019, 16(6):331-345.

[2]
武娜, 朱宝利. 人体肠道微生物与健康[J]. 科学, 2013, 65(2):13-16.

WU N, ZHU B L. Human gut microbiota and healthy[J]. Science, 2013, 65(2):13-16. (in Chinese)

DOI

[3]
翟齐啸, 田丰伟, 王刚, 等. 肠道微生物与人体健康的研究进展[J]. 食品科学 2013, 34(15):337-341.

DOI

ZHAI Q X, TIAN F W, WANG G, et al. Progress in research on the role of intestinal microbiota in human health[J]. Food Science, 2013, 34(15):337-341. (in Chinese)

[4]
LEE W J, HASE K. Gut microbiota-generated metabolites in animal health and disease[J]. Nature Chemical Biology, 2014, 10(6):416-424.

DOI

[5]
HOOPER L V, LITTMAN D R, MACPHERSON A J. Interactions between the microbiota and the immune system[J]. Science, 2012, 336(6086):1268-1273.

DOI PMID

[6]
RUFF W E, GREILING T M, KRIEGEL M A. Host-microbiota interactions in immune-mediated diseases[J]. Nature Reviews Microbiology, 2020, 18(9):521-538.

DOI PMID

[7]
YOO J Y, GROER M, DUTRA S V O, et al. Gut microbiota and immune system interactions[J]. Microorganisms, 2020, 8(10):1587.

DOI

[8]
MACDONALD T T, MONTELEONE G. Immunity,inflammation,and allergy in the gut[J]. Science, 2005, 307(5717):1920-1925.

DOI

[9]
NICHOLSON J K, HOLMES E, KINROSS J, et al. Host-gut microbiota metabolic interactions[J]. Science, 2012, 336(6086):1262-1267.

DOI PMID

[10]
HULLAR M A J, FU B C. Diet,the gut microbiome,and epigenetics[J]. The Cancer Journal, 2014, 20(3):170-175.

DOI

[11]
HOTAMISLIGIL G S. Inflammation and metabolic disorders[J]. Nature, 2006, 444(7121):860-867.

DOI

[12]
CHOPYK D M, GRAKOUI A. Contribution of the intestinal microbiome and gut barrier to hepatic disorders[J]. Gastroenterology, 2020, 159(3):849-863.

DOI PMID

[13]
QI X Y, YUN C Y, PANG Y L, et al. The impact of the gut microbiota on the reproductive and metabolic endocrine system[J]. Gut Microbes, 2021, 13(1):1894070.

DOI

[14]
CHEN W, LIU D, REN C H, et al. A special network comprised of macrophages,epithelial cells,and gut microbiota for gut homeostasis[J]. Cells, 2022, 11(2):307.

DOI

[15]
WEN C L, LI Q L, LAN F R, et al. Microbiota continuum along the chicken oviduct and its association with host genetics and egg formation[J]. Poultry Science, 2021, 100(7):101104.

DOI

[16]
KHAN S, MOORE R J, STANLEY D, et al. The gut microbiota of laying hens and its manipulation with prebiotics and probiotics to enhance gut health and food safety[J]. Applied and Environmental Microbiology, 2020, 86(13):e00600-e00620.

[17]
RICKE S C, DITTOE D K, OLSON E G. Microbiome applications for laying hen performance and egg production[J]. Poultry Science, 2022, 101(5):101784.

DOI

[18]
HUANG S M, RONG X P, LIU M L, et al. Intestinal mucosal immunity-mediated modulation of the gut microbiome by oral delivery of Enterococcus faecium against Salmonella enteritidis pathogenesis in a laying hen model[J]. Frontiers in Immunology, 2022, 13:853954.

DOI

[19]
PARK J W, JEONG J S, LEE S I, et al. Effect of dietary supplementation with a probiotic (Enterococcus faecium) on production performance,excreta microflora,ammonia emission,and nutrient utilization in ISA brown laying hens[J]. Poultry Science, 2016, 95(12):2829-2835.

DOI

[20]
AZZIZ R, CARMINA E, CHEN Z J, et al. Polycystic ovary syndrome[J]. Nature Reviews Disease Primers, 2016, 2:16057.

DOI PMID

[21]
THOMPSON J L, HINTON M. Antibacterial activity of formic and propionic acids in the diet of hens on Salmonellas in the crop[J]. British Poultry Science, 1997, 38(1):59-65.

PMID

[22]
O’MAY G A, REYNOLDS N, MACFARLANE G T. Effect of pH on an in vitro model of gastric microbiota in enteral nutrition patients[J]. Applied and Environmental Microbiology, 2005, 71(8):4777-4783.

DOI

[23]
SU Y, TIAN S L, LI D Y, et al. Association of female reproductive tract microbiota with egg production in layer chickens[J]. GigaScience, 2021, 10(9):giab067.

[24]
RYCHLIK I. Composition and function of chicken gut microbiota[J]. Animals, 2020, 10(1):103.

DOI

[25]
WATKINS B A, KRATZER F H. Effect of oral dosing of Lactobacillus strains on gut colonization and liver biotin in broiler chicks[J]. Poultry Science, 1983, 62(10):2088-2094.

DOI

[26]
BEASLEY S S, TAKALA T M, REUNANEN J, et al. Characterization and electrotransformation of Lactobacillus crispatus isolated from chicken crop and intestine[J]. Poultry Science, 2004, 83(1):45-48.

DOI

[27]
CLASSEN H L, APAJALAHTI J, SVIHUS B, et al. The role of the crop in poultry production[J]. World’s Poultry Science Journal, 2016, 72(3):459-472.

DOI

[28]
JIN L Z, HO Y W, ABDULLAH N, et al. Antagonistic effects of intestinal Lactobacillus isolates on pathogens of chicken[J]. Letters in Applied Microbiology, 1996, 23(2):67-71.

DOI

[29]
DE CESARE A, SALA C, CASTELLANI G, et al. Effect of Lactobacillus acidophilus D2/CSL (CECT 4529) supplementation in drinking water on chicken crop and caeca microbiome[J]. PLoS One, 2020, 15(1):e0228338.

[30]
GONG J H, SI W D, FORSTER R J, et al. 16S rRNA gene-based analysis of mucosa-associated bacterial community and phylogeny in the chicken gastrointestinal tracts:from crops to ceca[J]. FEMS Microbiology Ecology, 2007, 59(1):147-157.

DOI

[31]
DEMPSEY E, CORR S C. Lactobacillus spp. for gastrointestinal health:current and future perspectives[J]. Frontiers in Immunology, 2022, 13:840245.

DOI

[32]
章文明, 汪海峰, 刘建新. 乳酸杆菌益生作用机制的研究进展[J]. 动物营养学报, 2012, 24(3):389-396.

DOI

ZHANG W M, WANG H F, LIU J X. Mechanism of action of probiotic function of Lactobacilli[J]. Chinese Journal of Animal Nutrition, 2012, 24(3):389-396. (in Chinese)

[33]
宋滢. 罗曼粉蛋鸡肠道产氨相关菌的定植规律研究[D]. 硕士学位论文. 广州: 华南农业大学, 2018.

SONG Y. Study on implantation regularity of ammonia-related bacteria in intestinal tract of Roman pink egg chicken[D]. Master’s Thesis. Guangzhou: South China Agricultural University, 2018. (in Chinese)

[34]
ZHEN W R, LIU Y C, SHAO Y J, et al. Yeast β-glucan altered intestinal microbiome and metabolome in older hens[J]. Frontiers in Microbiology, 2021, 12:766878.

DOI

[35]
VAN STAAVEREN N, KRUMMA J, FORSYTHE P, et al. Cecal motility and the impact of Lactobacillus in feather pecking laying hens[J]. Scientific Reports, 2020, 10(1):12978.

DOI

[36]
GONG Y J, YANG H, WANG X, et al. Early intervention with cecal fermentation broth regulates the colonization and development of gut microbiota in broiler chickens[J]. Frontiers in Microbiology, 2019, 10:1422.

DOI PMID

[37]
RODRIGUES D R, BRIGGS W, DUFF A, et al. Cecal microbiome composition and metabolic function in probiotic treated broilers[J]. PLoS One, 2020, 15(6):e0225921.

[38]
ROTO S M, KWON Y M, RICKE S C. Applications of in ovo technique for the optimal development of the gastrointestinal tract and the potential influence on the establishment of its microbiome in poultry[J]. Frontiers in Veterinary Science, 2016, 3:63.

[39]
RODRIGUES D R, WINSON E, WILSON K M, et al. Intestinal pioneer colonizers as drivers of ileal microbial composition and diversity of broiler chickens[J]. Frontiers in Microbiology, 2019, 10:2858.

DOI PMID

[40]
刘继泽. 肠道微生物组成与蛋鸡生产性能及健康的关联性探究[D]. 硕士学位论文. 泰安: 山东农业大学, 2022.

LIU J Z. Association study of gut microbial composition with production performance and health in laying hens[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2022. (in Chinese)

[41]
ELOKIL A A, MAGDY M, MELAK S, et al. Faecal microbiome sequences in relation to the egg-laying performance of hens using amplicon-based metagenomic association analysis[J]. Animal, 2020, 14(4):706-715.

DOI PMID

[42]
WANG Y B, XU L P, SUN X L, et al. Characteristics of the fecal microbiota of high- and low-yield hens and effects of fecal microbiota transplantation on egg production performance[J]. Research in Veterinary Science, 2020, 129:164-173.

DOI PMID

[43]
LIU T, TANG J, FENG F Q. Medium-chain α-monoglycerides improves productive performance and egg quality in aged hens associated with gut microbiota modulation[J]. Poultry Science, 2020, 99(12):7122-7132.

DOI PMID

[44]
DERBYSHIRE S W G. Visceral afferent pathways and functional brain imaging[J]. The Scientific World Journal, 2003, 3:1065-1080.

DOI

[45]
CRYAN J F, O’RIORDAN K J, SANDHU K, et al. The gut microbiome in neurological disorders[J]. The Lancet Neurology, 2020, 19(2):179-194.

DOI

[46]
GAUB M P, BELLARD M, SCHEUER I, et al. Activation of the ovalbumin gene by the estrogen receptor involves the Fos-Jun complex[J]. Cell, 1990, 63(6):1267-1276.

PMID

[47]
MORRISON D J, PRESTON T. Formation of short chain fatty acids by the gut microbiota and their impact on human metabolism[J]. Gut Microbes, 2016, 7(3):189-200.

DOI PMID

[48]
DE VADDER F, KOVATCHEVA-DATCHARY P, GONCALVES D, et al. Microbiota-generated metabolites promote metabolic benefits via gut-brain neural circuits[J]. Cell, 2014, 156(1/2):84-96.

DOI

[49]
AL-BATSHAN H A, SCHEIDELER S E, BLACK B L, et al. Duodenal Calcium uptake,femur ash,and eggshell quality decline with age and increase following molt[J]. Poultry Science, 1994, 73(10):1590-1596.

PMID

[50]
FENG J, LU M Y, WANG J, et al. Dietary oregano essential oil supplementation improves intestinal functions and alters gut microbiota in late-phase laying hens[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):72.

DOI PMID

[51]
ZAISS M M, JONES R M, SCHETT G, et al. The gut-bone axis:how bacterial metabolites bridge the distance[J]. Journal of Clinical Investigation, 2019, 129(8):3018-3028.

DOI

[52]
GULTEMIRIAN M L, CORTI H R, CHAIA A P, et al. Fermentation in vitro of a mixture of dietary fibers and cane molasses by the cecal microbiota:application on mineral absorption through the laying hen’s colonic epithelium[J]. Animal Feed Science and Technology, 2014, 191:76-82.

DOI

[53]
LI H R, ZANG Y Q, WANG C, et al. The interaction between microorganisms,metabolites,and immune system in the female genital tract microenvironment[J]. Frontiers in Cellular and Infection Microbiology, 2020, 10:609488.

DOI

[54]
CHEN C, SONG X L, WEI W X, et al. The microbiota continuum along the female reproductive tract and its relation to uterine-related diseases[J]. Nature Communications, 2017, 8(1):875.

DOI PMID

[55]
LEE S, LA T M, LEE H J, et al. Characterization of microbial communities in the chicken oviduct and the origin of chicken embryo gut microbiota[J]. Scientific Reports, 2019, 9(1):6838.

DOI PMID

[56]
RÉHAULT-GODBERT S, GUYOT N, NYS Y. The golden egg:nutritional value,bioactivities,and emerging benefits for human health[J]. Nutrients, 2019, 11(3):684.

DOI

[57]
SHI R, YANG X, CHEN L, et al. Pathogenicity of Shigella in chickens[J]. PLoS One, 2014, 9(6):e100264.

DOI

[58]
WANG X Q, ZHU P, SUN Z H, et al. Uterine metabolomic analysis for the regulation of eggshell calcification in chickens[J]. Metabolites, 2021, 11(9):575.

DOI

[59]
SAMIULLAH S, ROBERTS J R. The location of protoporphyrin in the eggshell of brown-shelled eggs[J]. Poultry Science, 2013, 92(10):2783-2788.

DOI PMID

[60]
DE LA FUENTE R, SCHLEIFER K H, GÖTZ F, et al. Accumulation of porphyrins and pyrrole pigments by Staphylococcus aureus ssp. anaerobius and its aerobic mutant[J]. FEMS Microbiology Letters, 1986, 35(2/3):183-188.

[61]
SPARKS N H C. Eggshell pigments-from formation to deposition[J]. Avian Biology Research, 2011, 4(4):162-167.

DOI

[62]
AGOSTINIS C, MANGOGNA A, BOSSI F, et al. Uterine immunity and microbiota:a shifting paradigm[J]. Frontiers in Immunology, 2019, 10:2387.

DOI

[63]
DAI D, QI G H, WANG J, et al. Intestinal microbiota of layer hens and its association with egg quality and safety[J]. Poultry Science, 2022, 101(9):102008.

DOI

[64]
ZIMMERMAN N P, VONGSA R A, WENDT M K, et al. Chemokines and chemokine receptors in mucosal homeostasis at the intestinal epithelial barrier in inflammatory bowel disease[J]. Inflammatory Bowel Diseases, 2008, 14(7):1000-1011.

DOI PMID

[65]
YOSHIMURA Y. Avian β-defensins expression for the innate immune system in hen reproductive organs[J]. Poultry Science, 2015, 94(4):804-809.

DOI PMID

[66]
NII T, ISOBE N, YOSHIMURA Y. Effects of interleukin-1β and -6 on the expression of ion transporters involved in eggshell mineralization in cultured hen uterine mucosal tissue[J]. The Journal of Poultry Science, 2018, 55(2):142-149.

DOI

[67]
NARSALE A A, CARSON J A. Role of interleukin-6 in cachexia:therapeutic implications[J]. Current Opinion in Supportive and Palliative Care, 2014, 8(4):321-327.

DOI

[68]
FENG J, ZHANG H J, WU S G, et al. Uterine transcriptome analysis reveals mRNA expression changes associated with the ultrastructure differences of eggshell in young and aged laying hens[J]. BMC Genomics, 2020, 21(1):770.

DOI PMID

文章导航

/