综述

肠道类器官模型的构建和应用研究进展

  • 邱广志 ,
  • 喻礼怀 ,
  • 张昌卫 ,
  • 董丽 , *
展开
  • 扬州大学动物科学与技术学院,扬州 225009
* 董 丽,副教授,硕士生导师,E-mail:

邱广志(1999—),男,河北承德人,硕士研究生,研究方向为猪的营养代谢与调控。E-mail:

Office editor: 菅景颖

收稿日期: 2023-01-12

  网络出版日期: 2023-07-11

基金资助

2022年江苏省研究生科研与实践创新计划项目(SJCX22-1799)

苏北科技专项——富民强村科技帮促项目(SZ-HAX202205)

Progress in Construction and Application of Intestinal Organoid Models

  • QIU Guangzhi ,
  • YU Lihuai ,
  • ZHANG Changwei ,
  • DONG Li , *
Expand
  • College of Animal Science and Technology, Yangzhou University, Yangzhou 225009, China
* associate professor, E-mail:

Received date: 2023-01-12

  Online published: 2023-07-11

摘要

肠道类器官是体外研究肠道干细胞和肠上皮细胞较好的工具,应用前景广泛,建立并优化肠道类器官模型,对于肠道干细胞和肠上皮细胞的基础研究和临床疾病的调控具有重要意义。本文主要从肠道类器官的定义和发展历程出发,综述了肠道类器官在疾病建模等领域的应用,重点总结了人、鼠和猪肠道类器官模型的构建方法,可为肠道类器官模型的构建和应用提供参考。

本文引用格式

邱广志 , 喻礼怀 , 张昌卫 , 董丽 . 肠道类器官模型的构建和应用研究进展[J]. 动物营养学报, 2023 , 35(7) : 4231 -4237 . DOI: 10.12418/CJAN2023.393

Abstract

Intestinal organoids are a good tool to study intestinal stem cells and intestinal epithelial cells in vitro, which has a wide application prospect. The establishment and optimization of intestinal organoid model is of great significance for the basic research of intestinal stem cells and intestinal epithelial cells and the regulation of clinical diseases. Based on the definition and development history of intestinal organoids, this paper further reviewed the application of intestinal organoids in disease modeling and other fields, and focused on the construction methods of human, mouse and pig intestinal organoids. This paper can provide theoretical reference for the construction and application of intestinal organoid models.

肠道类器官(intestinal organoids,IOs)模型的构建是一项技术突破,活体分离的隐窝干细胞在体外培养形成立体的隐窝-绒毛结构,该过程区别于常见的肠上皮细胞体外培养,可更好地用于研究肠道干细胞的功能和肠上皮细胞稳态[1]。最常见的是二维(2D)和三维(3D)肠道类器官模型,2D单层细胞培养一直是药物研发的主要手段,但对于某些应用而言,它们并非理想选择[2],在疾病建模中的作用较小。因此,研究人员多年来一直致力于开发3D培养系统,以更好地体现体内细胞反应,包括预测药物反应[3]。肠道类器官模型可以应用于疾病建模[4]、疾病治疗药物的开发[5]、疾病发生机制的研究[6]和营养物质对肠道健康的干预机制研究。总的来说,肠道类器官在基因水平和形态特点上能够很好地模拟患者体内相应的组织,也适用于高通量的药物筛选,同时为疾病的个性化治疗提供了研究模型。本文综述了肠道类器官在疾病建模等领域的应用,重点总结了人、鼠和猪肠道类器官模型的构建方法,以期为肠道类器官模型的构建和应用提供参考。

1 肠道类器官概述

类器官是由多能干细胞(pluripotent stem cell,PSC)和成体干细胞(adult stem cell,ASC)通过模仿组织发育和体内平衡的生化和物理线索而产生的[7]。肠道类器官是由多种肠细胞组成的体外培养模型,具有中空腔花瓣状结构,包含绒毛和隐窝状结构,能够长期自我更新,可稳定低温保存和复苏[8]。Evans等[9]首先提出肠内培养的概念,将肠道类器官定义为体外生长的隐窝和绒毛结构。Sato等[10]将单个Lgr5+肠上皮干细胞(intestinal epithelial stem cells,IESC)产生的持续扩张的自组织称为类器官。2011年,Spence等[11]通过体外培养人类PSC,促使其分化为极化的柱状上皮,形成3D肠道“类器官”结构,构建了人肠道类器官。Li等[12]描述了一种稳健的长期3D胃肠道培养方法,该系统允许原代胃肠上皮作为具有增殖和多谱系分化的类器官剧烈扩增超过60 d。2012年,肠道干细胞联盟根据细胞组织的来源对类器官进行命名,比如,由肠道隐窝分离培养产生的类器官称为肠道类器官;由肝脏干细胞分离培养产生的类器官称为肝脏类器官[13]。在本文中,所有的3D器官结构都被称为“类器官”,并根据组织位置、种类和组织类型进行分类。
体外类器官模型是一个重大的技术突破,已经成为许多基础生物学和临床应用研究的重要工具,类器官同时也被定义为“完全来源于原代组织、胚胎干细胞(embryonic stem cell,ESC)或诱导性多能干细胞(induced pluripotent stem cells,iPSCs)的体外3D细胞簇,具有自我更新和自我组织的能力,并表现出与起源组织相似的器官功能”[14]。事实上,肠道类器官是在3D结构中自我组织的细胞簇,再现了其原生组织的主要特征。肠道类器官是一种隐窝-绒毛结构,可从成人体内的肠干细胞(intestinal epithelial cells,ISCs)、ESC或iPSCs中提取,具有作为个体化医学和研究平台的潜力。近年来,肠道类器官作为了解肠道环境的体外工具受到了广泛关注。

2 肠道类器官模型的构建

肠道类器官模型的构建关键步骤之一是识别器官组织中的干细胞,这一直是研究中的热点和难点[8]。Braverman等[15]在2018建立了一个简单的2D肠样单层培养系统,能够重现肠上皮和3D类器官的许多特性。早期在立体显微镜辅助下的类器官腔内注射方法,操作流程复杂且耗时长,易破坏肠道类器官结构的完整性。而基于Transwell插入物中聚碳酸酯半透膜和基质胶涂层的2D单层类器官培养体系,既保留了干细胞更新生长效率和肠道类器官结构极性,也使得调控培养基中的生长因子和测定上皮功能更加容易,减少了肠道类器官封闭内腔为试验操作带来的限制[16]
目前最常见是人、鼠、猪肠道类器官模型的构建。在下文中将分别综述人、鼠、猪肠道类器官的构建方法。人、鼠、猪肠道隐窝的分离步骤基本相似,包括组织隐窝的分离、缓冲液的制备、培养基的制备等,但是隐窝分离缓冲液各不相同,人肠道类器官培养用的是冷螯合溶液[17],鼠和猪肠道类器官培养用的是隐窝提取液[18-19]。人、鼠、猪肠道类器官培养第1步,截取的肠道组织的长度也有一定差异,鼠肠段取10 cm左右、猪肠段取4 cm左右、人肠段取5 cm左右。肠道类器官培养基与普通细胞培养基具有一定差异,肠道类器官培养基除了包含细胞生长必需的营养物质外,还需添加肠道干细胞增殖分化所必需的生长因子。由于存在种属差异,需要对培养基成分进行调整,在人肠道类器官培养基中需加入Wnt、R-spondin1、Noggin生长因子,在鼠肠道类器官培养基中需要加入表皮生长因子(epidermal growth factor,EGF)、Noggin、R-spondin1生长因子,在猪肠道类器官培养基中需加入EGF、Noggin、R-spondin1、Wnt3a生长因子[20]。上述生长因子的特定组合构建起人、鼠、猪肠道类器官的培养体系,生长因子的添加是成功培养肠道类器官的关键。

2.1 人肠道类器官的培养

人肠道类器官的培养步骤主要包括:人肠道组织隐窝的分离、缓冲液的制备、培养基的制备等。参照前人的试验方法[17,21-23],本文总结了人肠道类器官的培养方法,具体步骤如下:1)取人肠道组织大约5 cm,放到有预冷的磷酸盐缓冲溶液(PBS)的培养皿中,使用刀片刮掉绒毛,用预冷的PBS反复冲洗;2)将刮掉绒毛的人肠道组织转移到有预冷PBS的离心管中,用剪子剪成5 mm的碎片,进行冲洗,静置;3)弃掉上清液,然后将破碎的组织转移到冷螯合缓冲液[含2 mmol/L 乙二胺四乙酸(EDTA)、5.6 mmol/L Na2HPO4、8.0 mmol/L KH2PO4、96.2 mmol/L NaCl、1.6 mmol/L KCl、43.4 mmol/L蔗糖、54.9 mmol/L 山梨醇、0.5 mmol/L DL-二硫苏糖醇]中,盖上盖并密封,将管子以低角度倾斜放置在轨道振动筛上,在37 ℃下140 r/min振荡30~45 min;4)定期检查溶液的浊度,溶液看起来浑浊,没有大团块即可;5)用移液管将振荡后的组织移到离心管上的100 μm细胞过滤器上,使用吸管使细胞悬浮液通过过滤器,大的肠道碎片会留在过滤器上;6)用5 mL DMEM培养基冲洗过滤器,并将溶液转移到15 mL新离心管中,在4 ℃下450×g离心5 min;7)弃掉上清液,将沉淀重悬于红细胞裂解缓冲液中,并在室温下孵育;8)孵育后向细胞溶液中添加5 mL DMEM培养基,在4 ℃下450×g离心5 min,并抽吸上清液;9)用DMEM培养基洗涤沉淀3次,每次洗涤后在4 ℃下450×g离心5 min,并抽吸上清液;10)在未稀释的基质胶(BME)中重新悬浮最终沉淀,BME的体积取决于沉淀多少,通常将来自约30 mg组织的沉淀物接种在300 μL BME中;11)取15 μL悬浮液置于预热的24孔板正中间,将24孔板置于细胞培养箱中,让液滴凝固;12)小心地向每个孔中添加500 μL补充10 μmol/L RhoKi(含有AdvDMEM、B27补充物等),并将平板放回培养箱,每隔3~4 d更换培养基,培养6~7 d进行传代。人肠道类器官第1天发育成小圆球状,第3天出现芽孢,第5~7天芽孢向外突出,形成似肠绒毛形状。

2.2 鼠肠道类器官的培养

鼠肠道类器官的培养步骤主要包括:鼠肠道隐窝的分离、隐窝提取液的制备、培养基的制备等。参照前人的试验方法[18,24-27],本文总结了鼠肠道类器官的培养方法,具体步骤如下:1)将小鼠处死后取10 cm左右肠段,放入PBS中;2)将小肠剪开并用冰冷的PBS冲洗多次来去除管腔内容物,用盖玻片刮掉绒毛,再用冰冷的PBS冲洗数遍;3)将肠道组织切成5~10 mm长,放进离心管中,并加入冰冷的PBS同时用移液管轻轻吹打,重复多次,直到上清液几乎透明,最后一次清洗完后,静置在冰上直到肠片段沉底后,弃掉上清;4)加入30 mL冰冷的隐窝提取液(PBS中加入2 mmol/L EDTA),并在37 ℃水浴中孵育,孵育结束后弃去上清液,然后加入预冷的PBS,用力摇动1 min,让组织块沉淀,将上清液收集到新鲜的离心管中并保持在冰上并写上甲;5)再重复上述步骤2次以获得乙、丙2个试管,在光学显微镜下检查每个离心管的内容物,来确定它们是否含有富集的隐窝部分,如有必要,可再次重复洗脱步骤;6)在含有隐窝的洗脱液中加入胎牛血清(fetal bovine serum,FBS),在4 ℃下以100×g离心含有隐窝的上清液;7)离心结束后弃掉上清,加入完全培养基,培养基成分包括DMEM/F12、1%的谷氨酰胺增补剂等,在4 ℃下600 r/min离心5 min,取10 μL隐窝重悬液在显微镜下计数隐窝数;8)离心管中加入等量的冷Matrigel(Matrigel由Matrix与ADF培养基以7∶3混合制成),使含隐窝的基础培养基和Matrigel的比例为1∶1,用移液器轻轻混匀(最终浓缩200个隐窝在50 μL Matrigel中),确保混合物保持低温;9)将50 μL混合物接种到预热的24孔板的每个孔的中心,置于细胞培养箱中,每孔加入500 μL ENR培养基(ENR培养基包括50 ng/mL EGF、100 ng/mL Noggin等)。培养基应每3 d更换1次,培养7~10 d传代。成功培养出的小鼠肠道类器官可清晰看见从肠道组织中分离出的隐窝结构,培养1 d后开始出现球型结构,第5天成长为一个“花瓣状”立体结构,第7天“花瓣状”立体结构迅速增大,可以进行传代。

2.3 猪肠道类器官的培养

猪肠道类器官的培养步骤主要包括:猪肠道隐窝的分离、缓冲液的制备、培养基的制备等。参照前人的试验方法[19,28-31],本文总结了仔猪肠道类器官的培养方法,具体步骤如下:1)仔猪屠宰取肠段(4 cm左右),纵向切开,PBS(4 ℃预冷)冲洗干净,然后用载玻片片刮去绒毛,将组织剪成5~10 mm长,转移至离心管(含有30 mL PBS)中反复冲洗;2)弃去上清液,加入新的预冷PBS,将肠道碎片转移到30 mL PBS(含30 mmol/L EDTA和1 mmol/L DL-二硫苏糖醇)中,在100 r/min的摇床上进行冰下孵育;3)孵育结束后,取离心管在冰上静置,待细胞下沉后弃掉上清,将组织转移到离心管中并加冷隐窝缓冲液,同时剧烈摇晃,释放肠道隐窝;4)用细胞过滤器将组织过滤到新离心管中,去除绒毛部分和碎片,为了从单个细胞中分离隐窝,将隐窝部分在4 ℃下以200×g离心3 min,弃掉上清液;5)将沉淀重悬于冷隐窝缓冲液中,并转移到置于冰上的离心管中,充分混匀,进入细胞间,将离心管在4 ℃下以300×g离心2 min,吸去上清液,加Matrigel,可视细胞量多少来加,细胞较多可加到500 μL,细胞少可加250 μL;6)取10 μL悬浮液滴在计数板上计数后弃去,推算出离心管中隐窝数量;7)弃去上清液,根据推算出的隐窝数量加入Matrigel重悬隐窝,吹打混匀后,取出预热好的24孔板,向每个孔中央滴入50 μL悬液,小心避免起泡;8)在室温下静置,然后将其放入细胞培养箱中,计时15 min;9)拿出24孔板,每孔加入500 μL完全培养基,完全培养基包括1×N2补充剂、1×B27补充剂等,每隔3~4 d更换培养基,培养6~7 d进行传代。猪肠道类器官培养成功时,第1天发育成小圆球状,第5天类肠团出现明显的出芽现象(图1),第7天类肠团的体积迅速增大,此时的类肠团活性较好,应及时传代培养。
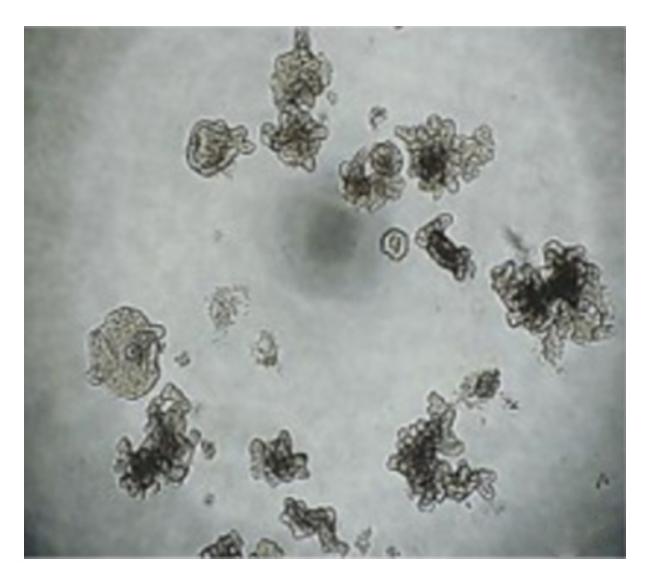
图1 显微镜观察培养第5天的猪肠道类器官

Fig.1 Microscopically observed pig intestinal organoids on day 5 of culture[31]

3 肠道类器官模型的应用

3.1 肠道类器官模型在疾病建模研究中的应用

肠道类器官模型可以应用于疾病建模的研究。例如,Cao等[32]开发了小鼠结直肠癌(coloretal cancer,CRC)肠道类器官模型,并筛选它们是否存在表观遗传活性化合物,如组蛋白去乙酰化酶(histone deacetylase,HDAC)抑制剂、Sirtuin-调节剂和甲基转移酶抑制剂等。目前,已经建成的肠道类器官疾病模型包括:传染病感染模型,比如轮状病毒[33]、沙门氏菌感染模型[34];癌症模型,比如直肠癌模型[35]。这些肠道类器官疾病模型的建立为探索传染病和癌症发生的确切机制及其防治提供了很好的体外研究平台。

3.2 肠道类器官模型在疾病治疗药物开发中的应用

肠道类器官疾病模型也可用于研究新药物的功能、药物毒性以及药物的生物利用度和组织反应性[36]。有研究表明,可从人肠道类器官培养物中提取胰岛素样物质,或寻求可直接抑制转录调节因子叉头框蛋白O1(Forkhead box protein O1,FOXO1)的生物小分子作为1型糖尿病的治疗药物[37-38]。Dekkers等[39]研究了囊性纤维化跨膜传导调节因子(cystic fibrosis transmembrane conductance regulator,CFTR)膜蛋白对肠道类器官系统中药物VX-770和VX-809系列反应,结果表明这些药物可用于囊性纤维化胃肠道疾病的治疗。在另一项研究中,Lorenzi等[40]向具有突变肿瘤抑制基因的肠道类器官中加入化疗药物5-氟尿嘧啶,用肠道类器官模型研究药物的耐药性。

3.3 肠道类器官模型在疾病发生机制研究中的应用

有研究表明,肠道类器官模型可用于易感小鼠中由柠檬酸杆菌引起的致命性腹泻模型的研究[41];同时,肠道类器官模型也可用于幽门螺杆菌感染发病机制的研究,肠道类器官模型还可以作为一个系统来识别生物活性微生物产品并评估它们对宿主上皮的潜在作用[42]。肠道类器官模型还可以应用于基因组编辑技术集成的研究,例如,CRISPR/Cas9[43]与肠道类器官培养系统的集成有关,基因编辑有助于将肠道类器官转化为多功能培养系统[44]。肠道类器官模型也可应用于疾病发生机制研究,包括ISC生态位(1个生物所占生境的最小单位)在干细胞自我更新和分化中的一些作用[10]
除了在以上研究中进行应用外,肠道类器官还可作为细胞的治疗[45]和药物输送[46]的工具,并可作为细胞或结肠移植的替代来源[47]。已有研究在小鼠中进行了肠道类器官移植,结果表明它有助于修复损伤后的结肠[48]

3.4 肠道类器官模型在研究营养物质对肠道健康的干预机制中的应用

小肠上皮细胞是研究小肠吸收、运输、以及评价小肠激素在小肠损伤中的作用的重要细胞模型[50]。近年来,随着类器官技术的发展,以“小肠”为代表的肠道类器官由于其所含的细胞种类较多,已逐渐成为营养学研究的一个热点,并已有人开始尝试利用小肠类器官来研究营养物质对肠道健康的干预机制。Zietek等[49]利用小鼠小肠类器官模型,分析了胰高糖素样肽-1(glucagon-like peptide-1,GLP-1)具有葡萄糖浓度剂量依赖性,证明小鼠小肠类器官可作为研究肠道营养物质吸收、药物转运和肠细胞代谢的体外模型。最近的一项研究中,Filippello等[50]利用肠道类器官,分析了高浓度葡萄糖对肠内分泌细胞分化的影响,结果显示,高浓度葡萄糖会对肠内分泌细胞中相关标记物的表达产生抑制作用,从而降低肠促胰岛素的分泌。这一研究为介入治疗2型糖尿病提供了参考。Park等[51]通过肠道类器官模型证明了短链脂肪酸(乙酸、丁酸、丙酸)可以促进肠道类器官的发育,且短链脂肪酸对促进肠上皮细胞的增殖和更新具有重要作用。在另一项研究中,Cai等[52]测量了不同浓度和不同膳食成分对小鼠肠道类器官生长速率的影响,结果表明,咖啡酸以浓度依赖性方式抑制肠道类器官生长,维生素C对肠道类器官生长没有影响。综上可知,肠道类器官可应用于营养物质对肠道健康的干预机制研究。

4 小结与展望

本文主要从肠道类器官的定义和发展历程出发,综述了肠道类器官在疾病建模等领域的应用,重点总结了人、鼠和猪肠道类器官的构建方法。肠道类器官是体外研究肠道干细胞和肠上皮细胞较好的工具,应用前景广泛,建立并优化肠道类器官对于肠道干细胞和肠上皮细胞的基础研究和临床疾病的调控具有重要意义。总体而言,类器官在模拟发育和疾病、作为药物测试工具和治疗方法方面具有巨大潜力。
[1]
ZHAO Q, GUAN J W, WANG X. Intestinal stem cells and intestinal organoids[J]. Journal of Genetics and Genomics, 2020, 47(6):289-299.

DOI PMID

[2]
HOFFMANN P, SCHNEPEL N, LANGEHEINE M, et al. Intestinal organoid-based 2D monolayers mimic physiological and pathophysiological properties of the pig intestine[J]. PLoS One, 2021, 16(8):e0256143.

[3]
LEI Y G, JEONG D, XIAO J F, et al. Developing defined and scalable 3D culture systems for culturing human pluripotent stem cells at high densities[J]. Cellular and Molecular Bioengineering, 2014, 7(2):172-183.

PMID

[4]
GHORBANINEJAD M, ASADZADEH-AGHDAEI H, BAHARVAND H, et al. Intestinal organoids:a versatile platform for modeling gastrointestinal diseases and monitoring epigenetic alterations[J]. Life Sciences, 2023, 319:121506.

DOI

[5]
PARK E, KIM H K, JEE J H, et al. Development of organoid-based drug metabolism model[J]. Toxicology and Applied Pharmacology, 2019, 385:114790.

DOI

[6]
WALLACH T E, BAYRER J R. Intestinal organoids:new frontiers in the study of intestinal disease and physiology[J]. Journal of Pediatric Gastroenterology and Nutrition, 2017, 64(2):180-185.

DOI

[7]
LANCASTER M A, KNOBLICH J A. Organogenesis in a dish:modeling development and disease using organoid technologies[J]. Science, 2014, 345(6194):1247125.

DOI

[8]
DERRICOTT H, LUU L, FONG W Y, et al. Developing a 3D intestinal epithelium model for livestock species[J]. Cell and Tissue Research, 2019, 375(2):409-424.

DOI PMID

[9]
EVANS G S, FLINT N, SOMERS A S, et al. The development of a method for the preparation of rat intestinal epithelial cell primary cultures[J]. Journal of Cell Science, 1992, 101(Pt 1):219-231.

DOI

[10]
SATO T, VAN ES J H, SNIPPERT H J, et al. Paneth cells constitute the niche for Lgr5 stem cells in intestinal crypts[J]. Nature, 2011, 469(7330):415-418.

DOI

[11]
SPENCE J R, MAYHEW C N, RANKIN S A, et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro[J]. Nature, 2011, 470(7332):105-109.

DOI

[12]
LI X N, OOTANI A, KUO C. An air-liquid interface culture system for 3D organoid culture of diverse primary gastrointestinal tissues[J]. Methods in Molecular Biology, 2016, 1422:33-40.

DOI PMID

[13]
STELZNER M, HELMRATH M, DUNN J C Y, et al. A nomenclature for intestinal in vitro cultures[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2012, 302(12):G1359-G1363.

[14]
FATEHULLAH A, TAN S H, BARKER N. Organoids as an in vitro model of human development and disease[J]. Nature Cell Biology, 2016, 18(3):246-254.

DOI

[15]
BRAVERMAN J, YILMAZ Ö H.From 3D organoids back to 2D enteroids[J]. Developmental Cell, 2018, 44(5):533-534.

DOI PMID

[16]
ALTAY G, LARRAÑAGA E, TOSI S, et al. Self-organized intestinal epithelial monolayers in crypt and villus-like domains show effective barrier function[J]. Scientific Reports, 2019, 9(1):10140.

DOI PMID

[17]
HERNANDEZ-GORDILLO V, KASSIS T, LAMPEJO A, et al. Fully synthetic matrices for in vitro culture of primary human intestinal enteroids and endometrial organoids[J]. Biomaterials, 2020, 254:120125.

DOI

[18]
TAKAHASHI Y, SATO S, KURASHIMA Y, et al. Reciprocal inflammatory signaling between intestinal epithelial cells and adipocytes in the absence of immune cells[J]. EBioMedicine, 2017, 23:34-45.

DOI PMID

[19]
LI Y, YANG N, CHEN J N, et al. Next-generation porcine intestinal organoids:an apical-out organoid model for swine enteric virus infection and immune response investigations[J]. Journal of Virology, 2020, 94(21):e01006-20.

[20]
俞东红, 曹华, 王心睿. 类器官的研究进展及应用[J]. 生物工程学报, 2021, 37(11):3961-3974.

YU D H, CAO H, WANG X R. Advances and applications of organoids:a review[J]. Chinese Journal of Biotechnology, 2021, 37(11):3961-3974. (in Chinese)

[21]
PLEGUEZUELOS-MANZANO C, PUSCHHOF J, VAN DEN BRINK S, et al. Establishment and culture of human intestinal organoids derived from adult stem cells[J]. Current Protocols in Immunology, 2020, 130(1):e106.

[22]
HOLLOWAY E M, WU J H, CZERWINSKI M, et al. Differentiation of human intestinal organoids with endogenous vascular endothelial cells[J]. Developmental Cell, 2020, 54(4):516-528.e7.

DOI PMID

[23]
PUSCHHOF J, PLEGUEZUELOS-MANZANO C, MARTINEZ-SILGADO A, et al. Intestinal organoid cocultures with microbes[J]. Nature Protocols, 2021, 16(10):4633-4649.

DOI PMID

[24]
陆晓溪. 阿克曼菌促进肠干细胞增殖缓解肠炎机制的研究[D]. 硕士学位论文. 南京: 南京农业大学, 2020.

LU X X. Akkermansia muciniphila ameliorates intestinal inflammation through stimulation of intestinal stem cells proliferation[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2020. (in Chinese)

[25]
SATO T, STANGE D E, FERRANTE M, et al. Long-term expansion of epithelial organoids from human colon,adenoma,adenocarcinoma,and Barrett’s epithelium[J]. Gastroenterology, 2011, 141(5):1762-1772.

DOI

[26]
GJOREVSKI N, SACHS N, MANFRIN A, et al. Designer matrices for intestinal stem cell and organoid culture[J]. Nature, 2016, 539(7630):560-564.

DOI

[27]
LEE S B, HAN S H, PARK S. Long-term culture of intestinal organoids[J]. Methods in Molecular Biology, 2018, 1817:123-135.

DOI PMID

[28]
BEAUMONT M, BLANC F, CHERBUY C, et al. Intestinal organoids in farm animals[J]. Veterinary Research, 2021, 52(1):33.

DOI PMID

[29]
VERMEIRE B, GONZALEZ L M, JANSENS R J J, et al. Porcine small intestinal organoids as a model to explore ETEC-host interactions in the gut[J]. Veterinary Research, 2021, 52(1):94.

DOI PMID

[30]
LI H N, WANG Y L, ZHANG M X, et al. Establishment of porcine and monkey colonic organoids for drug toxicity study[J]. Cell Regeneration, 2021, 10(1):32.

DOI

[31]
JOO S S, GU B H, PARK Y J, et al. Porcine intestinal apical-out organoid model for gut function study[J]. Animals, 2022, 12(3):372.

DOI

[32]
CAO L, KURATNIK A, XU W L, et al. Development of intestinal organoids as tissue surrogates:cell composition and the epigenetic control of differentiation[J]. Molecular Carcinogenesis, 2015, 54(3):189-202.

DOI

[33]
YIN Y B, BIJVELDS M, DANG W, et al. Modeling rotavirus infection and antiviral therapy using primary intestinal organoids[J]. Antiviral Research, 2015, 123:120-131.

DOI PMID

[34]
YIN Y B, ZHOU D G. Organoid and enteroid modeling of Salmonella infection[J]. Frontiers in Cellular and Infection Microbiology, 2018, 8:102.

DOI

[35]
VAN DE WETERING M, FRANCIES H E, FRANCIS J M, et al. Prospective derivation of a living organoid biobank of colorectal cancer patients[J]. Cell, 2015, 161(4):933-945.

DOI PMID

[36]
BARTFELD S, CLEVERS H. Stem cell-derived organoids and their application for medical research and patient treatment[J]. Journal of Molecular Medicine, 2017, 95(7):729-738.

DOI PMID

[37]
CHEN K G, MALLON B S, PARK K, et al. Pluripotent stem cell platforms for drug discovery[J]. Trends in Molecular Medicine, 2018, 24(9):805-820.

DOI PMID

[38]
BOUCHI R, FOO K S, HUA H Q, et al. FOXO1 inhibition yields functional insulin-producing cells in human gut organoid cultures[J]. Nature Communications, 2014, 5:4242.

DOI PMID

[39]
DEKKERS J F, BERKERS G, KRUISSELBRINK E, et al. Characterizing responses to CFTR-modulating drugs using rectal organoids derived from subjects with cystic fibrosis[J]. Science Translational Medicine, 2016, 8(344):344ra84.

[40]
LORENZI F, BABAEI-JADIDI R, SHEARD J, et al. Fbxw7-associated drug resistance is reversed by induction of terminal differentiation in murine intestinal organoid culture[J]. Molecular Therapy:Methods & Clinical Development, 2016, 3:16024.

[41]
FOULKE-ABEL J, IN J, KOVBASNJUK O, et al. Human enteroids as an ex-vivo model of host-pathogen interactions in the gastrointestinal tract[J]. Experimental Biology and Medicine, 2014, 239(9):1124-1134.

DOI

[42]
HILL D R, SPENCE J R. Gastrointestinal organoids:understanding the molecular basis of the host-microbe interface[J]. Cellular and Molecular Gastroenterology and Hepatology, 2016, 3(2):138-149.

DOI

[43]
DROST J, VAN JAARSVELD R H, PONSIOEN B, et al. Sequential cancer mutations in cultured human intestinal stem cells[J]. Nature, 2015, 521(7550):43-47.

DOI

[44]
ABERLE M R, BURKHART R A, TIRIAC H, et al. Patient-derived organoid models help define personalized management of gastrointestinal cancer[J]. British Journal of Surgery, 2018, 105(2):e48-e60.

DOI

[45]
WANG Q, CHENG H, PENG H S, et al. Non-genetic engineering of cells for drug delivery and cell-based therapy[J]. Advanced Drug Delivery Reviews, 2015, 91:125-140.

DOI PMID

[46]
DAVOUDI Z, PEROUTKA-BIGUS N, BELLAIRE B, et al. Intestinal organoids containing poly (lactic-co-glycolic acid) nanoparticles for the treatment of inflammatory bowel diseases[J]. Journal of Biomedical Materials Research Part A, 2018, 106(4):876-886.

DOI

[47]
SUGIMOTO S, OHTA Y, FUJII M, et al. Reconstruction of the human colon epithelium in vivo[J]. Cell Stem Cell, 2018, 22(2):171-176.e5.

DOI

[48]
FORDHAM R P, YUI S, HANNAN N R F, et al. Transplantation of expanded fetal intestinal progenitors contributes to colon regeneration after injury[J]. Cell Stem Cell, 2013, 13(6):734-744.

DOI PMID

[49]
ZIETEK T, RATH E, HALLER D, et al. Intestinal organoids for assessing nutrient transport,sensing and incretin secretion[J]. Scientific Reports, 2015, 5:16831.

DOI

[50]
FILIPPELLO A, DI MAURO S, SCAMPORRINO A, et al. High glucose exposure impairs L-cell differentiation in intestinal organoids:molecular mechanisms and clinical implications[J]. International Journal of Molecular Sciences, 2021, 22(13):6660.

DOI

[51]
PARK J H, KOTANI T, KONNO T, et al. Promotion of intestinal epithelial cell turnover by commensal bacteria:role of short-chain fatty acids[J]. PLoS One, 2016, 11(5):e0156334.

[52]
CAI T, QI Y J, JERGENS A, et al. Effects of six common dietary nutrients on murine intestinal organoid growth[J]. PLoS One, 2018, 13(2):e0191517.

文章导航

/