研究论文

不同万寿菊粕水平对绵羊瘤胃细菌多样性的影响

  • 陈颜旭 , 1, 2 ,
  • 古再丽努尔·艾麦提 1 ,
  • 郭同军 , 1, * ,
  • 郭雪峰 2
展开
  • 1 新疆畜牧科学院饲料研究所,乌鲁木齐 830011
  • 2 塔里木大学动物科学与技术学院,阿拉尔 843300
* 郭同军,研究员,硕士生导师,E-mail:

陈颜旭(1998—),男,重庆人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 陈 鑫

收稿日期: 2023-01-28

  网络出版日期: 2023-07-11

基金资助

新疆维吾尔自治区中央引导地方科技发展资金项目(ZYYD2023C04)

Effects of Different Marigold Meal Levels on Rumen Bacterial Diversity in Sheep

  • CHEN Yanxu , 1, 2 ,
  • AMAT Guzalnur 1 ,
  • GUO Tongjun , 1, * ,
  • GUO Xuefeng 2
Expand
  • 1 Institute of Feed Research, Xinjiang Academy of Animal Science, Urumqi 830011, China
  • 2 College of Animal Science and Technology, Tarim University, Alar 843300, China
* professor, E-mail:

Received date: 2023-01-28

  Online published: 2023-07-11

摘要

本试验为了探索不同万寿菊粕水平对绵羊瘤胃细菌多样性的影响,采用单因素完全随机试验设计,选取体重为(28.30±3.95) kg的杜泊羊×湖羊杂交F1代公羊50只,随机分为5个组,每组10只。各组饲喂不同饲粮,对照组(CK组)饲粮不添加万寿菊粕,A组、B组、C组、D组饲粮中分别添加5%、15%、25%和35%万寿菊粕。试验期40 d,其中预试期10 d,正试期30 d。在第31天,从各组中随机选取4只公羊,经口腔采集瘤胃液,利用高通量测序技术进行瘤胃细菌多样性分析。结果表明:5组样品共获得1 068个操作分类单元(OTU),其中共有OTU 296个;D组ACE指数极显著低于CK组(P<0.01),C组显著低于CK组(P<0.05)。D组Chao1指数极显著低于CK组(P<0.01),C组显著低于CK组(P<0.05)。D组Shannon指数极显著低于CK组(P<0.01)。各组在门水平的优势菌群为拟杆菌门和厚壁菌门。D组拟杆菌门相对丰度极显著高于CK组(P<0.01),C组显著高于CK组(P<0.05);C组和D组变形菌门相对丰度极显著低于CK组(P<0.01);B组、C组和D组疣微菌门相对丰度极显著低于CK组(P<0.01),D组显著低于A组(P<0.05);C组和D组蓝藻菌门的相对丰度极显著低于CK组(P<0.01),D组显著低于A组(P<0.05);C组和D组浮霉菌门的相对丰度极显著高于CK组(P<0.01),C组显著高于A组和B组(P<0.05),B组显著高于CK组(P<0.05)。属水平上的优势菌为普雷沃氏菌属、拟杆菌属、解琥珀酸菌属和奎因氏菌属。D组普雷沃氏菌属相对丰度极显著高于CK组(P<0.01);D组解琥珀杆菌属相对丰度极显著低于CK组(P<0.01),A组显著高于CK组(P<0.05),B组和C组极显著低于A组(P<0.01),显著低于CK组(P<0.05);C组和D组琥珀酸弧菌属相对丰度显著低于CK组(P<0.05)。D组厌氧弧菌属相对丰度极显著低于CK组(P<0.01)。综上所述,在绵羊饲粮中添加万寿菊粕水平为5%~15%时,不会影响绵羊瘤胃菌群丰富度和多样性;当添加万寿菊粕水平在25%~35%时,会降低绵羊瘤胃菌群丰富度和多样性,改变绵羊的菌群结构,增加拟杆菌门和普雷沃氏菌属的相对丰度,且普雷沃氏菌属和密螺旋体属相对丰度与万寿菊粕水平有较强的正相关性。

本文引用格式

陈颜旭 , 古再丽努尔·艾麦提 , 郭同军 , 郭雪峰 . 不同万寿菊粕水平对绵羊瘤胃细菌多样性的影响[J]. 动物营养学报, 2023 , 35(7) : 4453 -4464 . DOI: 10.12418/CJAN2023.414

Abstract

This experiment was conducted to investigate the effects of different levels of marigold meal on rumen bacterial diversity in sheep. A single-factor completely randomized experimental design was used, 50 hybrid F1 male lambs of Dorper sheep Hu sheep were randomly divided into 5 groups, with 10 sheep in each group. Each group was fed different diets, the control group (CK group) did not add marigold meal. Groups A, B, C and D were fed diets with 5%, 15%, 25% and 35% marigold meal, respectively. The trial period was lasting 40 days, including 10 days of pre-trial period and 30 days of formal trial period. On the 30th day, rumen fluid was collected through the mouth, and the rumen bacterial diversity was analyzed using high-throughput sequencing technology. The results showed that 1 068 operational taxonomic unit (OTU) were obtained from 5 groups, of which 296 were shared. The ACE index in group D was significantly lower than that in group CK (P<0.01), and that in group C was significantly lower than that in group CK (P<0.05). Chao1 index in group D was significantly lower than that in group CK (P<0.01), and that in group C was significantly lower than that in group CK (P<0.05). Shannon index in group D was significantly lower than that in group CK (P<0.01). Bacteroidota and Firmicutes were the dominant bacteria in each group at the phylum level. The relative abundance of Bacteroidota in group D was significantly higher than that in group CK (P<0.01), and the relative abundance of Bacteroides in group C was significantly higher than that in group CK (P<0.05). The relative abundance of Proteobacteria in groups C and D was significantly lower than that in group CK (P<0.01). The relative abundance of Verrucomicrobiota in groups B, C and D was significantly lower than that in group CK (P<0.01). The relative abundance of Cyanobacteria in groups C and D was significantly lower than that in group CK (P<0.01). The relative abundance of Planctomycetota in groups C and D was significantly higher than that in group CK (P<0.01). At the genus level, the dominant bacteria were Prevotella, Bacteroides, Succiniclasticum and Quinella. The relative abundance of Prevotella in groups C and D was significantly higher than that in group CK (P<0.01). The relative abundance of Succiniclasticum in group D was significantly lower than that in group CK (P<0.01), group A was significantly higher than group CK (P<0.01), and groups B and C were significantly lower than group A (P<0.01), and significantly lower than group CK (P<0.05). The relative abundance of Succinivibrio in groups C and D was significantly lower than that in group CK (P<0.05). The relative abundance of Anaerovibrio in group D was significantly lower than that in group CK (P<0.01). To sum up, adding 5% to 15% marigold meal in sheep diet will not affect the richness and rumen flora diversity of sheep, while adding 25% to 35% marigold meal will reduce the richness and diversity of sheep rumen flora, change the flora structure of sheep, and increase the relative abundance of Bacteroides and Prevotella, and there is a strong positive correlation between the relative abundances of Prevotella and Treponema and the level of marigold meal.

万寿菊(Tagetes erecta L.)为菊科、万寿菊属1年生草本植物,以花和根入药,具有清热解毒、止咳化痰等功效[1-3]。据报道万寿菊花产量高,高产田鲜花产量可达45 t/hm2以上[4]。万寿菊粕是万寿菊花经过提取叶黄素后的工业副产物,产量可观,如果开发利用得当可以缓解饲草资源不足[5-6]。万寿菊粕的营养成分一定程度优于玉米秸秆、棉花秸秆等粗饲料[7-9]。万寿菊粕中含有脂质类、酚酸类、生物碱、氨基酸及其衍生物、黄酮类化合物[10-13]。研究表明,菊花中活性物质(如叶黄素类、挥发油类)具有抗氧化、提高免疫力、促进生长性能、改善畜禽产品品质等功能[14]。前人研究主要集中在家禽、单胃动物、草食动物和水产养殖等方面[15-18],在反刍动物方面的相关研究较少,而反刍动物瘤胃是消化饲粮的重要器官,其中瘤胃内细菌最多也是主要的功能群落,另外反刍动物机体也受到微生物代谢的调控,其中饲料种类、组成比例均会影响瘤胃微生物区系,从而影响动物机体[19]。大量研究表明,精粗比、饲养水平、饲料添加剂和饲料原料类型等变化均能调节瘤胃细菌群落多样性,改善瘤胃微生物区系[20-23]。本课题组前期研究表明,万寿菊粕中含有的活性成分可对绵羊生长性能、血清生化指标和腹泻率产生一定影响[24]。目前关于万寿菊粕对反刍动物瘤胃菌群调控的研究还鲜有报道,其是否影响瘤胃微生物区系以及微生物对宿主的互作关系有待探究。因此,本研究以绵羊为对象,利用高通量测序技术,通过添加不同水平的万寿菊粕,探究其对绵羊瘤胃内菌群组成及菌群变化的影响,以期为万寿菊粕开发和合理利用提供一定的数据支持。

1 材料与方法

1.1 试验材料

万寿菊粕由新疆喀什某生物科技有限公司提供。

1.2 试验动物及试验设计

在新疆喀什地区巴楚县喀什丰泰农牧科技有限公司羊场选取体重为(28.30±3.95) kg的绵羊公羔50只,经驱虫后依据体重进行单因素完全随机试验设计,随机分为5个组,每组10只,每组小群饲养,其中对照组(CK组)饲粮不添加万寿菊粕,A组、B组、C组、D组饲粮中分别添加5%、15%、25%和35%万寿菊粕。预试期10 d,正试期30 d。

1.3 试验饲粮与饲养管理

试验饲粮配制参考NRC(2007)绵羊饲养标准[25],基于等能等氮原则配制体重30 kg、日增重300 g的饲粮。具体饲粮组成及营养水平与本课题组前期试验[24]一致,于每天09:00和19:30各饲喂1次,自由采食,自由饮水,每天每组保持15%的剩料量。

1.4 样品采集

预试期和正试期结束后称重,用于平均日增重计算,第31天晨饲前,从各组中随机选取4只绵羊,用脚踏式瘤胃液采集装置经口腔采集瘤胃液,用4层纱布过滤,然后将收集的滤液立即放入液氮冻存,然后转置-80 ℃冰箱保存,待后续送于北京百迈客生物有限公司,用PacBio测序平台对细菌16S rRNA基因进行高通量测序,。

1.5 样品检测及生物信息分析

DNA的提取:使用TGuide S96 Magnetic Soil/Stool DNA Kit[天根生化科技(北京)有限公司]提取瘤胃液中细菌DNA,具体操作见说明书。
扩增用引物:16S全长引物27F_(16S-F) (5'-AGRGTTTGATYNTGGCTCAG-3');1492R_(16S-R) (5'-TASGGHTACCTTGTTASGACTT-3')。
扩增程序:95 ℃预变性3 min,30个循环(95 ℃变性30 s,55 ℃退火30 s,72 ℃延伸90 s),最后72 ℃延伸7 min。
建库测序:提取样品总DNA后,根据16S全长引物27F和1492R,合成带有Barcode的特异引物,进行PCR扩增并对其产物进行纯化、定量和均一化形成测序文库(SMRT Bell),建好的文库先进行文库质检,质检合格的文库用PacBio Sequel进行测序。PacBio Sequel下机数据为bam格式,通过Smrtlink分析软件导出CCS文件,根据Barcode序列识别不同样品的数据并转化为fastq格式数据。
数据预处理:将PacBio下机数据导出为CCS文件(CCS序列使用Pacbio提供的Smrtlink工具获取)后,主要有如下3个步骤,1)CCS识别,使用lima v1.7.0软件,通过Barcode对CCS进行识别,得到Barcode-CCS序列数据;2)CCS长度过滤,使用百迈客公司自主研发的软件,对Barcode-CCS进行过滤,得到有效序列;3)去除嵌合体,使用UCHIME v4.2软件,鉴定并去除嵌合体序列,得到Optimization-CCS序列。
多样性分析:在百迈克生物云计算平台(www.biocloud.net)进行分析。
相关性分析:云计算平台(www.biocloud.net)选择典范对应(RDA/CCA)分析,选择属水平分析同时以万寿菊粕添加水平和平均日增重作为环境因子进行组间分析。

1.6 数据处理

采用SPSS 26.0统计软件进行one-way ANOVA分析并以Duncan氏法进行多重比较,P<0.01为差异极显著,P<0.05为差异显著。数据结果采用“平均值±标准差”表示。

2 结果与分析

2.1 各组样本操作分类单元(OTU)聚类分析

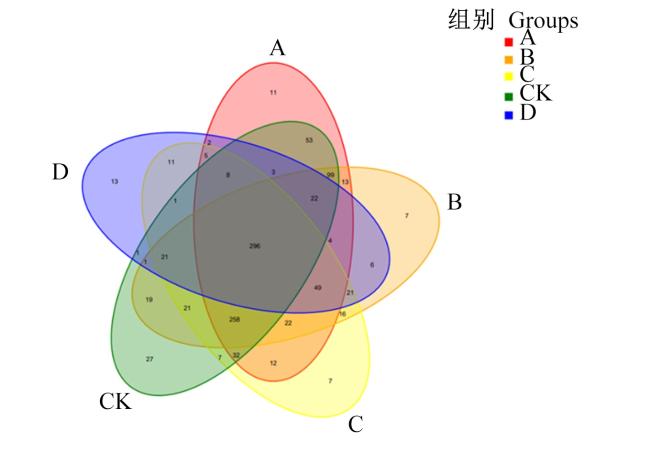
20个瘤胃液样品测序后通过Barcode识别后共获得172 555条CCS序列,每个样品至少产生6 301条CCS序列,平均产生8 628条CCS序列。共产生有效序列172 482条,经质量控制后得到170 361条高质量序列,序列长度为1 460 bp左右。在基于序列相似性大于97%的原则划分不同的OTU,CK组、A组、B组、C组和D组分别有543、537、509、431、307个OTU,各组共有的OTU为296个。各组独有的OTU分别为27、11、7、7、13个,其中CK组的特有OTU数最多,B组和C组OTU数最少(图1)。
图1 OTU维恩图

不同颜色代表不同分组,由Venn图可看出不同组之间共有和独有的OTU数详细情况。

Fig.1 OTU Venn diagram

Different colors represent different groups, and the Venn diagram shows the detailed information on the number of shared and unique OTU among different groups.

2.2 绵羊瘤胃细菌菌群Alpha多样性及Beta多样性分析

表1可知,覆盖率均约等于1,表明本次每个样品的测序结果均能反映瘤胃的菌群结构。D组OTU数极显著低于CK组和其他各组(P<0.01),C组显著低于CK组和A组(P<0.05),其他各组间差异不显著(P>0.05)。D组ACE指数极显著低于CK组(P<0.01),C组显著低于CK组(P<0.05),其余各组无显著差异(P>0.05)。D组Chao1指数极显著低于CK组(P<0.01),C组显著低于CK组(P<0.05),其余各组无显著差异(P>0.05)。D组Shannon指数极显著低于CK组(P<0.01),其余各组差异不显著(P>0.05)。
表1 瘤胃细菌菌群样本Alpha多样性指数

Table 1 Alpha diversity indexes of rumen bacterial flora samples

项目
Items
CK组
Group CK
A组
Group A
B组
Group B
C组
Group C
D组
Group D
PP-value
线性
Linear
二次
Quadratic
OTU数目
OTU number
543.00±22.24Aa 537.00±51.40Aa 509.00±85.57Aab 431.00±72.15Ab 307.00±41.57Bb 0.001 0.006
ACE指数
ACE index
679.16±24.41Aa 658.90±42.22Aa 634.46±56.31Aa 559.38±53.34Ab 373.39±30.96Bc 0.002 0.019
Chao1指数
Chao1 index
680.27±35.70Aa 656.11±30.57Aa 646.78±36.56Aa 563.4±48.69Ab 376.89±26.73Bc 0.001 0.015
Simpson指数
Simpson index
0.97±0.03 0.98±0.01 0.98±0.01 0.98±0.01 0.98±0.01 0.958 0.525
Shannon指数
Shannon index
7.29±0.18a 7.09±0.35a 7.11±0.51a 6.85±0.39a 4.86±0.45b 0.013 0.004
覆盖率
Coverage
0.99±0.00 0.98±0.00 0.98±0.00 0.98±0.00 0.99±0.00 0.961 0.061

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean significant difference (P<0.01). The same as below.

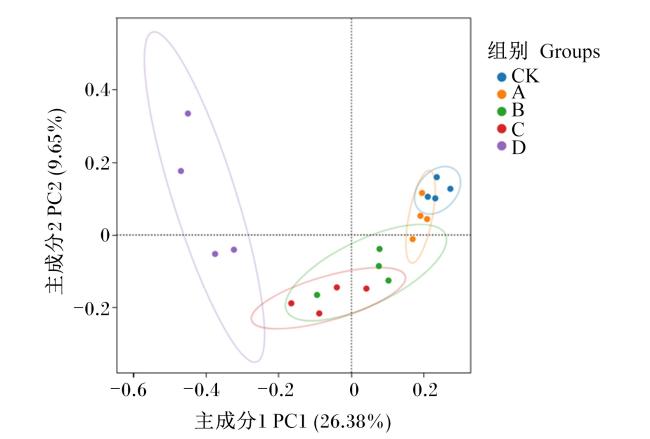
图2可知,主成分1(PC1)贡献率为26.38%,主成分2(PC2)的贡献率为9.65%,用Binary-Jaccard非加权距离算法,不同颜色点代表各组中的样本,2个样本间点间距越远表明物种组成有明显差异,点距越近表明物种组成相似。D组和CK组的样本点间距较大,表明D组的菌群组成较CK组有明显差异。C组相较CK组距离较远,说明C组和CK组的菌群结构有明显差异。CK组的置信圈与A组和B组的置信圈间距较近,且样本点较近且集中,说明这3组在OTU水平上菌群组成较为相似。
图2 不同万寿菊粕水平对绵羊瘤胃细菌菌群影响的主成分分析

Fig.2 PCA of effects of different levels of marigold meal on rumen bacterial flora of sheep

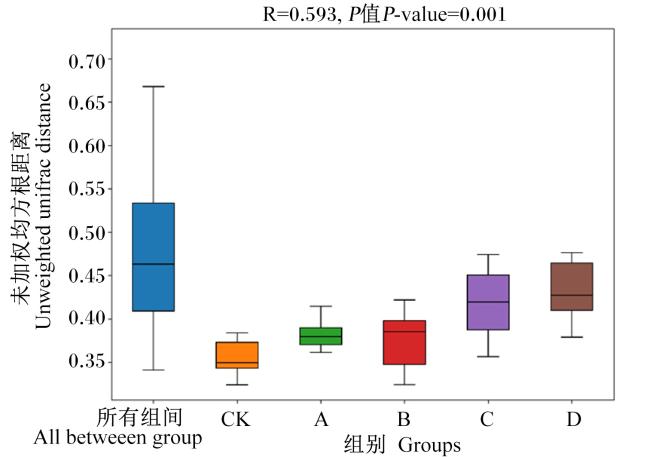
图3可知,CK组和A组的箱线图较为集中,表明组内差异较小。R=0.593,R>0.5表示各组间为中等差异,P=0.001表明各组间差异极显著,这说明在本研究中采样或者分组没有出现较大问题,能够证实数据的有效性。
图3 各组瘤胃菌群的相似性分析

横坐标表示所有组间距离和不同分组,纵坐标表示不同的距离。一般R>0.75:大差异;R>0.5:中等差异,R>0.25:小差异。R等于0或在0附近,说明组间没有差异。

Fig.3 Analysis of similarities of rumen microflora in each group

The horizontal axis represents all between groups and different groups, while the vertical axis represents different distances. General R>0.75: significant difference; R>0.5: medium difference; R>0.25: small difference. If R is equal to or near 0, it indicates that there is no difference between the groups.

2.3 绵羊瘤胃细菌门水平的组成分析

表2可知,D组拟杆菌门相对丰度极显著高于CK组(P<0.01),C组显著高于CK组(P<0.05),其他各组差异不显著(P>0.05),而随着万寿菊粕水平的增加各组在二次曲线趋势上无显著差异(P>0.05)。C组和D组变形菌门相对丰度极显著低于CK组(P<0.01),其他各组差异不显著(P>0.05),各组在二次曲线趋势上无显著变化(P>0.05)。B组、C组和D组疣微菌门相对丰度极显著低于CK组(P<0.01),D组显著低于A组(P<0.05),各组在二次曲线趋势上差异不显著(P>0.05)。C组和D组蓝藻菌门的相对丰度极显著低于CK组(P<0.01),D组显著低于A组(P<0.05),其他各组差异不显著(P>0.05),各组在二次曲线趋势上无显著变化(P>0.05)。C组和D组浮霉菌门的相对丰度极显著高于CK(P<0.01),C组显著高于A组和B组(P<0.05),B组显著高于CK组(P<0.05),各组在二次曲线趋势上差异不显著(P>0.05)。
表2 不同万寿菊粕水平对绵羊瘤胃细菌门水平相对丰度的影响

Table 2 Effects of different levels of marigold meal on relative abundance of bacteria at phylum level in rumen of sheep %

项目
Items
CK组
Group CK
A组
Group A
B组
Group B
C组
Group C
D组
Group D
PP-value
线性
Linear
二次
Quadratic
拟杆菌门
Bacteroidota
33.25±8.26Bc 42.80±8.92ABbc 44.81±6.55ABbc 52.27±8.68ABab 64.75±15.30Aa 0.001 0.694
厚壁菌门
Firmicutes
26.73±7.60 33.54±4.16 32.27±1.45 25.93±4.41 25.29±12.10 0.304 0.320
变形菌门
Proteobacteria
10.12±3.43Aa 9.99±0.55Aa 8.16±1.72Aa 1.93±1.22Bb 0.22±0.14Bb 0.001 0.488
疣微菌门
Verrucomicrobiota
6.46±3.01Aa 3.74±0.22ABab 2.39±0.12Bbc 1.84±1.49Bbc 0.30±0.27Bc 0.001 0.248
蓝藻菌门
Cyanobacteria
3.56±1.97Aa 3.02±1.51ABab 1.41±0.87ABabc 0.98±1.05Bbc 0.03±0.01Bc 0.001 0.565
螺旋体菌门
Spirochaetota
0.86±1.14 0.55±0.29 1.14±0.74 1.85±0.82 1.58±1.51 0.150 0.833
拟杆菌门
Bacteroidetes
1.69±0.74 1.16±1.08 0.98±0.32 0.94±0.57 0.63±0.57 0.106 0.707
浮霉菌门
Planctomycetota
0.09±0.06Bd 0.36±0.12Bcd 0.65±0.44ABbc 1.28±0.49Aa 1.11±0.04Aab 0.001 0.135
纤维杆菌门
Fibrobacterota
0.68±0.31 0.67±0.32 0.62±0.27 0.60±0.34 1.17±0.22 0.132 0.075
脱硫杆菌门
Desulfobacterota
0.10±0.07 0.12±0.09 0.10±0.07 0.13±0.02 0.05±0.01 0.313 0.229

2.4 绵羊瘤胃细菌属水平的物种组成分析

表3可知,D组普雷沃氏菌属相对丰度极显著高于CK组(P<0.01),其他各组差异不显著(P>0.05),各组在二次曲线趋势上无显著差异(P>0.05)。D组解琥珀杆菌属相对丰度极显著低于CK组和A组(P<0.01),显著低于B组(P<0.05),B组和C组极显著低于A组(P<0.01),显著低于CK组(P<0.05),A组显著高于CK组(P<0.05),各组在二次曲线趋势上无显著差异(P>0.05)。C组和D组琥珀酸弧菌属相对丰度显著低于CK组(P<0.05),其他各组差异不显著(P>0.05),各组在二次曲线趋势上差异不显著(P>0.05)。D组厌氧弧菌属相对丰度极显著低于CK组和B组(P<0.01),显著低于A组(P<0.05),其他各组差异不显著(P>0.05),各组在二次曲线趋势上无显著差异(P>0.05)。
表3 不同万寿菊粕水平对绵羊瘤胃细菌属水平相对丰度的影响

Table 3 Effects of different levels of marigold meal on relative abundance of bacteria at genus level in rumen of sheep %

项目
Items
CK组
Group CK
A组
Group A
B组
Group B
C组
Group C
D组
Group D
PP-value
线性
Linear
二次
Quadratic
普雷沃氏菌属
Prevotella
25.20±7.35Bb 32.97±10.55ABb 34.28±8.16ABb 39.62±16.30ABb 60.25±18.00Aa 0.002 0.296
瘤胃球菌属
Ruminococcus
1.92±0.48 2.41±0.87 2.73±0.98 2.76±1.74 1.55±1.04 0.832 0.102
拟杆菌属
Bacteroides
4.42±2.07 3.73±2.10 3.57±2.36 3.28±2.58 1.91±2.31 0.193 0.794
月形单胞菌属
Selenomonas
1.80±1.42 3.56±3.07 3.92±2.14 2.33±1.98 2.17±2.46 0.675 0.319
解琥珀杆菌属
Succiniclasticum
3.30±1.29ABb 4.05±0.45Aa 1.92±0.72BCc 1.52±1.06BCcd 0.31±0.15Cd 0.001 0.773
奎因氏菌属
Quinella
2.26±1.38 2.11±1.72 2.20±1.48 1.09±0.83 1.08±0.05 0.905 0.778
琥珀酸弧菌属
Succinivibrio
2.27±1.10a 1.25±0.51ab 1.71±1.18ab 0.41±0.44b 0.28±0.08b 0.031 0.852
密螺旋体属
Treponema
1.14±1.04 1.00±0.94 1.39±0.56 1.51±1.19 1.58±1.57 0.417 0.915
真杆菌属
Eubacterium
0.83±0.39 0.85±0.41 0.73±0.29 0.98±0.47 0.74±0.02 0.925 0.880
厌氧弧菌属
Anaerovibrio
0.87±0.47Aa 0.78±0.32ABa 0.87±0.41Aa 0.47±0.14ABab 0.09±0.08Bb 0.010 0.705

2.5 不同万寿菊粕水平和平均日增重与瘤胃细菌丰度的相关性分析

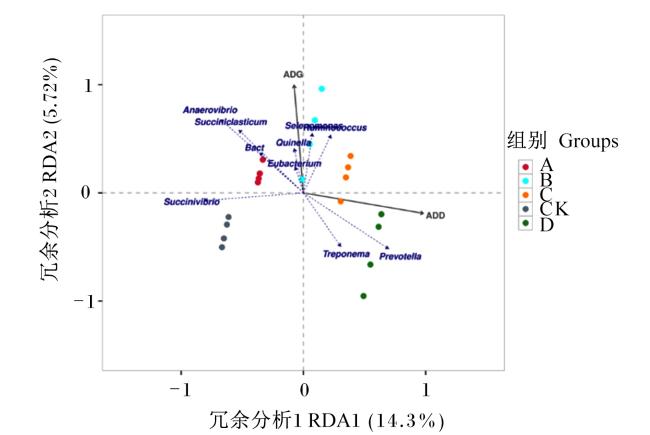
图4可知,瘤胃微生物菌群的变化可能与万寿菊粕添加水平及绵羊平均日增重存在一定关联性,其中,普雷沃氏菌属、密螺旋体属相对丰度与寿菊粕添加水平有较强的正相关关系,琥珀酸弧菌属相对丰度和寿菊粕添加水平呈负相关关系。解琥珀杆菌属、厌氧弧菌属、真杆菌属、奎因氏菌属、瘤胃球菌属、月形单胞菌属、拟杆菌属相对丰度均与平均日增重呈正相关关系。
图4 万寿菊粕水平和平均日增重的RDA/CCA分析

Anaerovibrio:厌氧弧菌属;Succiniclasticum:解琥珀杆菌属;Prevotella:普雷沃氏菌属;Treponema:密螺旋体属;Succinivibrio:琥珀酸弧菌属;Eubacterium:真杆菌属;Quinella:奎因氏菌属; Ruminococcus:瘤胃球菌属;Selenomonas:月形单胞菌属。

Fig.4 RDA/CCA analysis of marigold meal level and average daily gain

3 讨论

3.1 不同万寿菊粕水平对绵羊瘤胃细菌多样性的影响

瘤胃作为反刍动物重要的消化器官其功能的发挥离不开其中的各种微生物,而微生物的多样性与品种、年龄、饲粮、饲养环境等因素密切相关[22,26]。Alpha多样性能够反映出样本中物种的丰富度和多样性,其中ACE指数和Chao1指数主要与微生物群落丰富度相关,其数值越大说明样品中的物种越多,丰富度越高;而Shannon指数和Simpson指数和微生物群落多样性相关,Shannon指数越大表明微生物群落多样性越高,Simpson指数越小表明微生物群落多样性越高。肖润等[27]研究表明,在云南云岭牛饲粮中添加桑枝叶粉显著提高了ACE指数和Chao1指数,改善了云南云岭牛瘤胃的微生物多样性。董春晓等[28]发现,添加油菜秸秆组的湖羊瘤胃微生物群落多样性和丰富度均显著高于其他组,认为是油菜秸秆中多糖、半纤维素及淀粉等成分影响了菌群变化所致。李与琦等[29]研究表明,随着微贮棉秆的添加量增加,湖羊瘤胃中微生物的Shannon指数、OTU数显著降低,这可能和饲粮中高比例微贮棉秆对瘤胃菌群的丰富度的影响有关。Zhang等[30]研究表明,高精料饲粮能够显著降低山羊瘤胃菌群的丰富度和多样性,改变瘤胃微生物的组成,同时对瘤胃液和肝脏及血清中代谢物产生影响,这表明高精料型饲粮对山羊整体健康状况产生影响。另外,有研究发现,奶牛饲粮中添加苜蓿黄酮能使瘤胃内细菌的种类和多样性升高,分析可能与黄酮类化合物抑制一些病原微生物、调控各菌群间关系、控制微生物大量生长有关,还可能与黄酮类化合物影响一些微生物代谢进而调控菌群数量有关[31]。在本试验中,随着万寿菊粕添加水平的增加,各组OTU数、ACE指数、Chao1指数、Shannon指数均有一定程度降低,D组极显著低于CK组。本试验中主成分分析结果表明,D组样本相较CK组较为分散,这也表明高水平的万寿菊粕影响了绵羊瘤胃菌群的多样性。本研究与他人研究结果类似,高添加水平的万寿菊粕可能起到调控瘤胃菌群丰度和多样性的作用,本试验饲粮为等能等氮饲粮,但随着万寿菊粕添加水平的提高,饲粮的精粗比逐渐降低,可能与之有一定关联,但导致瘤胃菌群丰度和多样性变化的因素还有很多,还可能与万寿菊粕中多糖类、黄酮类等物质影响有关。

3.2 不同水平万寿菊粕对绵羊瘤胃细菌菌群结构的影响

本研究中所有瘤胃液样品中细菌共鉴定得到13个门、17个纲、27个目、33个科、50个属和65个种。大量研究结果表明,反刍动物瘤胃内的优势菌门为拟杆菌门和厚壁菌门[32-35]。拟杆菌门是革兰氏阴性菌,在降解多糖、蛋白质、碳水化合物,以及吸收氨基酸和合成菌体蛋白等功能上较为重要;厚壁菌门是革兰氏阳性菌,以降解纤维为主;变形菌门是革兰氏阴性菌,主要包含较多致病菌,肠道中变形菌门相对丰度的升高反映了肠道微生物群落结构的失调或不稳定[36]。本研究结果显示,瘤胃中门水平优势菌主要是拟杆菌门和厚壁菌门,与前人研究结果一致,并且本研究中随着万寿菊粕添加水平的上升,35%组的拟杆菌门的相对丰度极显著高于CK组,而厚壁菌门相对丰度各组间无显著差异。任伟忠等[37]研究表明,不同比例组合饲料(玉米青贮、谷草、羊草)对干奶期奶牛瘤胃菌群无明显影响,因为各组合精粗比一致,认为这种现象可能与各粗饲料相似性较高,不能引起瘤胃菌群变化有关。此外,有研究表明,拟杆菌门的相对丰度与饲粮中中性洗涤纤维水平呈负相关性[38]。在本试验中,随着万寿菊粕添加水平上升,玉米秸秆比例下降,瘤胃中拟杆菌门相对丰度增加可能与万寿菊粕与玉米秸秆的比例变化有关。Jiang等[39]研究表明,在小牛饲粮中添加发酵玉米蛋白粉能有效提高断奶犊牛瘤胃中拟杆菌门相对丰度,降低变形菌门相对丰度,这可能与发酵玉米蛋白粉含有较多氨基酸和小肽有关。还有研究显示,与添加莫能菌素组相比,在犊牛饲粮中添加牛至精油能提高蛋白质降解菌的数量,增加白色瘤胃球菌数量,认为与牛至精油中较高的酚类化合物抗菌作用相关[21]。另外,瘤胃内微生物的变化还受到动物品种、年龄、饲粮组成和环境等影响[40-41]。在本试验中,C组和D组变形菌门相对丰度极显著低于CK组,表明饲粮添加高水平寿菊粕能够降低致病菌数量并利于绵羊瘤胃的微生物平衡,可能与万寿菊粕中含有活性成分如黄酮类、氨基酸衍生物类影响瘤胃菌群有关,其具体机制还有待探究。
本研究中,瘤胃细菌属水平的优势菌属为普雷沃氏菌属,普雷沃氏菌属属于拟杆菌门,能够对半纤维素、淀粉和木聚糖等植物非纤维多糖降解利用,还具有降解蛋白质的作用,解琥珀杆菌属能将饲粮中的碳水化合物分解为琥珀酸,进一步产生丙酸,琥珀酸弧菌属具有一定的纤维降解能力[42-43]。研究表明,高剂量的苜蓿黄酮能够抑制锥形杆菌属和琥珀酸弧菌属细菌,可能影响半纤维素的降解[31],还有学者研究显示,缩合单宁也能调控瘤胃内纤维降解菌的相对丰度[44-45]。朱靖等[46]研究显示,一定量的辣椒碱能够对瘤胃厚壁菌门和拟杆菌门有促进作用,对普雷沃氏菌属影响较多,也能降低瘤胃琥珀酸弧菌属相对丰度,可能是植物提取物中的酚类化合物作用瘤胃微生物所致。也有研究显示,在水牛饲粮中添加一些植物次级代谢物(挥发油、皂苷、单宁)未对黄色瘤胃球菌产生影响,而使琥珀酸丝状杆菌的相对丰度显著降低[47]。李世歌等[48]研究表明,饲喂杂交构树青贮能够使瘤胃内普雷沃氏菌属相对丰度有增加趋势,推测是高比例杂交构树青贮降低了饲粮整体中性洗涤纤维水平以及高比例下杂交构树青贮中含有的抗营养因子单宁含量较高共同所致。还有研究报道,体外发酵条件下添加板栗单宁能够极显著提高普雷沃氏菌属和月形单胞菌属的丰度,甜叶菊提取物能够增加密螺旋体属的相对丰度[49]。本试验中,万寿菊粕添加水平的增加极显著提高了普雷沃氏菌属的相对丰度,此外,D组解琥珀杆菌属和琥珀酸弧菌属相对丰度均有显著降低,推测高水平万寿菊粕饲粮能够影响纤维瘤胃降解纤维素的能力。

3.3 万寿菊粕添加水平和平均日增重与瘤胃菌群的相关性分析

RDA/CCA关联性分析中,普雷沃氏菌属和万寿菊粕添加水平有较高相关性,拟杆菌属、奎因氏菌属相对丰度和平均日增重有一定关联性,瘤胃内微生物菌群之间作用复杂,菌群间的协同、拮抗作用均会导致瘤胃内微生物菌群变化。还有学者研究发现,高精料饲粮会导致山羊瘤胃菌群的丰富度下降,使普雷沃氏菌属丰度增加,同时高精料诱导的瘤胃上皮损伤和菌群结构的变化还会使白细胞介素-1和白细胞介素-6的基因表达量以及脂多糖含量增加,这种情况会导致瘤胃代谢紊乱,还可能进一步影响山羊机体健康导致蹄叶炎的产生[50]。胡晓宇[51]的研究表明,奶牛瘤胃酸中毒下的菌群紊乱导致菌群丰度和多样性改变能促使致病菌过度生长繁殖,致使血液中脂多糖含量增加引起炎症。本研究中,D组菌群丰度和多样性相较CK组有显著变化,随着万寿菊粕添加水平增加,菌群多样性及丰度显著降低,可能与高水平万寿菊粕组中饲粮含有的活性成分较高相关,另外也可能和高添加水平组饲粮精粗比变化有关,并且本课题组前期试验显示饲粮中万寿菊粕添加水平在35%时可能是生物碱等含量升高导致绵羊明显腹泻[24],这也可能与瘤胃菌群丰度和多样性降低导致菌群结构异常有一定关联。

4 结论

① 本试验条件下,饲粮万寿菊粕水平为5%~15%时,不会影响瘤胃细菌丰富度和多样性。
② 本试验条件下,饲粮万寿菊粕水平高于25%时,会降低绵羊瘤胃菌群丰富度和多样性,改变绵羊的菌群结构,增加拟杆菌门和普雷沃氏菌属相对丰度。
③ 本试验条件下,绵羊瘤胃普雷沃氏菌属和密螺旋体属相对丰度与万寿菊粕水平有较强的正相关性。
[1]
王志东, 梁容瑞, 李宗芳. 中药野菊花的药理作用研究进展[J]. 医学综述, 2009, 15(6):906-909.

WANG Z D, LIANG R R, LI Z F. Development in pharmacological research of Chrysanthemum indicum[J]. Medical Recapitulate, 2009, 15(6):906-909. (in Chinese)

[2]
张晓媛, 段立华, 赵丁. 菊花化学成分及药理作用的研究[J]. 时珍国医国药, 2008, 19(7):1702-1704.

ZHANG X Y, DUAN L H, ZHAO D. The investigation of chemical constituents and pharmacological functions of Chrysanthemum morifolium[J]. Lishizhen Medicine and Materia Medica Research, 2008, 19(7):1702-1704. (in Chinese)

[3]
蒋征奎, 李晓, 罗彬. 野菊花挥发油抗炎镇痛作用[J]. 中国实验方剂学杂志, 2015, 21(16):124-127.

JIANG Z K, LI X, LUO B. Anti-inflammatory and analgesic effects of essential oil from Chrysanthemi Indici Flos[J]. Chinese Journal of Experimental Traditional Medical Formulae, 2015, 21(16):124-127. (in Chinese)

[4]
朱亚, 赵永平, 李维翠, 等. 不同栽培密度对万寿菊产量及产量构成的影响[J]. 安徽农学通报, 2015, 21(12):49-50.

ZHU Y, ZHAO Y P, LI W C, et al. Effects of different planting densities on yield and yield composition of marigold[J]. Anhui Agricultural Science Bulletin, 2015, 21(12):49-50. (in Chinese)

[5]
赵舰. 菊花粕在蛋鸡日粮中的应用[D]. 硕士学位论文. 保定: 河北农业大学, 2015.

ZHAO J. Application of Chrysanthemum meal in laying hens diet[D]. Master’s Thesis. Baoding: Agricultural University of Hebei, 2015. (in Chinese)

[6]
武婷婷. 非常规饲料资源在肉牛育肥中的应用与典型日粮配方的研究[D]. 硕士学位论文. 南宁: 广西大学, 2018.

WU T T. Application of unconwentional feed resources and study on typical dietary formula on beef cattle fattening[D]. Master’s Thesis. Nanning: Guangxi University, 2018. (in Chinese)

[7]
袁玲, 王学梅, 王秋菊, 等. 万寿菊粉的营养价值评定[J]. 东北农业大学学报, 2010, 41(10):77-81.

YUAN L, WANG X M, WANG Q J, et al. Evaluation on nutritional value of marigold meal[J]. Journal of Northeast Agricultural University, 2010, 41(10):77-81. (in Chinese)

[8]
王泳, 宋杰, 何海迎, 等. 羊用11种植物性非常规饲料营养价值评定[J]. 饲料工业, 2019, 40(21):12-18.

WANG Y, SONG J, HE H Y, et al. Evaluation of nutritional value of 11 kinds of plant unconventional feed for sheep[J]. Feed Industry, 2019, 40(21):12-18. (in Chinese)

[9]
吴瑞凤, 阚春刚, 赵文渊, 等. 内蒙古地区万寿菊植株营养成分分析[J]. 广州化工, 2010, 38(8):184-185.

WU R F, KAN C G, ZHAO W Y, et al. Nutrition analysis of marigold in Inner Mongolia[J]. Guangzhou Chemical Industry, 2010, 38(8):184-185. (in Chinese)

[10]
李禹辰, 王迪, 樊蕊, 等. 亚临界丙酮提取万寿菊渣中抗氧化活性成分的研究[J]. 食品工业科技, 2013, 34(20):289-293.

LI Y C, WANG D, FAN R, et al. Subcritical acetone extraction of antioxidative components from marigold grounds[J]. Science and Technology of Food Industry, 2013, 34(20):289-293. (in Chinese)

[11]
马娜. 万寿菊花中主要有效成分的盐析萃取[D]. 硕士学位论文. 石河子: 石河子大学, 2017.

MA N. Salting out extraction of the main effective components from marigold[D]. Master’s Thesis. Shihezi: Shihezi University, 2017. (in Chinese)

[12]
李健, 宋帅娣, 张若男, 等. 黑龙江产万寿菊花精油的化学成分研究[J]. 化学与黏合, 2010, 32(6):42-44.

LI J, SONG S D, ZHANG R N, et al. Analysis of essential oil composition of Tagetes erecta L. flowers from Heilongjiang[J]. Chemistry and Adhesion, 2010, 32(6):42-44. (in Chinese)

[13]
LUYEN B T T, TAI B H, THAO N P, et al. Anti-inflammatory components of Chrysanthemum indicum flowers[J]. Bioorganic & Medicinal Chemistry Letters, 2015, 25(2):266-269.

DOI

[14]
李朋帅, 乔梦泽, 张雪, 等. 万寿菊提取物对太行鸡抗氧化能力及肠道形态的影响[J]. 中国畜牧杂志, 2022, 58(6):240-244.

LI P S, QIAO M Z, ZHANG X, et al. Effects of marigold extracts on antioxidant capacity and intestinal morphology of Taihang chickens[J]. Chinese Journal of Animal Science, 2022, 58(6):240-244. (in Chinese)

[15]
陈祥宇, 孙二东, 陈一凡, 等. 万寿菊提取物对太行鸡生产性能、蛋品质、免疫功能和抗氧化能力的影响[J]. 动物营养学报, 2021, 33(12):7160-7168.

DOI

CHEN X Y, SUN E D, CHEN Y F, et al. Effects of marigold extract on performance,egg quality,immune function and antioxidant capacity of Taihang chickens[J]. Chinese Journal of Animal Nutrition, 2021, 33(12):7160-7168. (in Chinese)

[16]
林城丽. 万寿菊粉与角黄素对黄金锦鲤着色,生长及抗氧化能力的影响[D]. 硕士学位论文. 天津: 天津农学院, 2017.

LIN C L. Effects of Marigold powder and canthaxanthin on coloring,growth and antioxidant capacity in ornamental carp (Yamabaki ogon)[D]. Master’s Thesis.Tianjin:Tianjin Agricultural University, 2017. (in Chinese)

[17]
MOEINI M M, GHAZI S H, SADEGHI S, et al. The effect of red pepper (Capsicum annuum) and marigold flower (Tageteserectus) powder on egg production,egg yolk color and some blood metabolites of laying hens[J]. Iranian Journal of Applied Animal Science, 2013, 3(2):301-305.

[18]
王秀. 菊花粉在兔饲料中的应用[J]. 江西饲料, 2010(2):41.

WANG X. Application of chrysanthemum powder in rabbit feed[J]. Jiangxi Feed, 2010(2):41. (in Chinese)

[19]
CASTILLO-GONZÁLEZ A R, BURROLA-BARRAZA M E, DOMÍNGUEZ-VIVEROS J, et al. Rumen microorganisms and fermentation[J]. Archivos de Medicina Veterinaria, 2014, 46(3):349-361.

DOI

[20]
SHAO Y X, ZHANG X, ZHANG H W, et al. Effects of dietary supplementation of bovine lactoferricin on rumen microbiota,lactation,and health in dairy goats[J]. Frontiers in Nutrition, 2021, 8:722303.

DOI

[21]
柏妍, 郎侠, 王彩莲, 等. 饲粮中添加牛至精油和莫能菌素对荷斯坦犊牛血清生化指标、消化酶活性及瘤胃微生物区系的影响[J]. 畜牧兽医学报, 2019, 50(12):2458-2469.

BAI Y, LANG X, WANG C L, et al. Effects of oregano essential oil and Monensin in diet on serum biochemical parameters,digestive enzyme activities and ruminal microflora of Holstein calves[J]. Acta Veterinaria et Zootechnica Sinica, 2019, 50(12):2458-2469. (in Chinese)

[22]
NEWBOLD C J, RAMOS-MORALES E. Review:ruminal microbiome and microbial metabolome:effects of diet and ruminant host[J]. Animal, 2020,14,Supplement 1:s78-s86.

[23]
马晓文, 李发弟, 李飞, 等. 饲粮大麦粉碎粒度对湖羊瘤胃微生物组成及肌肉脂肪酸的影响[J]. 草业学报, 2021, 30(12):202-211.

DOI

MA X W, LI F D, LI F, et al. Effect of dietary barley particle size on rumen microflora and muscle fatty acids in Hu sheep[J]. Acta Prataculturae Sinica, 2021, 30(12):202-211. (in Chinese)

[24]
陈颜旭, 郭同军, 古再丽努尔·艾麦提, 等. 饲粮添加万寿菊粕对绵羊生长性能、瘤胃发酵参数和血清生化指标的影响[J]. 动物营养学报, 2023, 35(1):403-413.

DOI

CHEN Y X, GUO T J, GUZALNUR A M T, et al. Effects of dietary marigold meal on growth performance,rumen fermentation parameters and serum biochemical indices of sheep[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):403-413. (in Chinese)

[25]
NRC. Nutrient requirements of small ruminants: sheep,goats,cervids, and new world camelids[S]. Washington,D.C.:The National Academies Press, 2007.

[26]
ZHOU Z M, FANG L, MENG Q X, et al. Assessment of ruminal bacterial and archaeal community structure in yak (Bos grunniens)[J]. Frontiers in Microbiology, 2017, 8:179.

[27]
肖润, 郑旺, 郑琳, 等. 桑枝叶粉对云南云岭牛瘤胃微生物区系的影响[J]. 草业科学, 2020, 37(10):2069-2078.

XIAO R, ZHENG W, ZHENG L, et al. Effects of mulberry branch and leaf powder on rumen microflora of Yunnan Yunling cattle[J]. Pratacultural Science, 2020, 37(10):2069-2078. (in Chinese)

[28]
董春晓, 吕佳颖, 牛骁麟, 等. 粗饲料来源对育肥湖羊瘤胃微生物区系及肌肉脂肪酸组成的影响[J]. 草业科学, 2019, 36(11):2926-2936.

DONG C X, LYU J Y, NIU X L, et al. Effects of dietary roughage sources on the rumen microflora and muscle fatty acids in finishing Hu lambs[J]. Pratacultural Science, 2019, 36(11):2926-2936. (in Chinese)

[29]
李与琦, 阳建华, 张涛, 等. 日粮中添加不同比例微贮棉秆对湖羊瘤胃微生物区系的影响[J]. 微生物学报, 2020, 60(8):1592-1604.

LI Y Q, YANG J H, ZHANG T, et al. Effect of different proportions fermented cotton stalk intake on rumen microflora of lambs[J]. Acta Microbiologica Sinica, 2020, 60(8):1592-1604. (in Chinese)

[30]
ZHANG R Y, LIU Y J, YIN Y Y, et al. Response of rumen microbiota,and metabolic profiles of rumen fluid,liver and serum of goats to high-grain diets[J]. Animal, 2019, 13(9):1855-1864.

DOI

[31]
占今舜. 苜蓿黄酮对奶牛生产性能、瘤胃代谢和免疫性能影响的研究[D]. 博士学位论文. 扬州: 扬州大学, 2016.

ZHAN J S. Effect of alfalfa flavonoids on production performance,ruminal metabolism and lmmunity[D]. Ph.D.Thesis. Yangzhou: Yangzhou University, 2016. (in Chinese)

[32]
KIM M, MORRISON M, YU Z T. Status of the phylogenetic diversity census of ruminal microbiomes[J]. FEMS Microbiology Ecology, 2011, 76(1):49-63.

DOI PMID

[33]
张红涛. 不同玉米青贮水平对荷斯坦后备牛瘤胃液微生物组及其代谢组的影响[D]. 博士学位论文. 北京: 中国农业大学, 2017.

ZHANG H T. Effects of corn silage levels on rumen fluid microbiota and its metabolome in Holstein heifers[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2017. (in Chinese)

[34]
韩旭峰. 日龄、日粮精粗比对陕北白绒山羊瘤胃微生物区系影响的研究[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2015.

HAN X F. Effects of age and dietary forage-to-concentrate ratios on rumen microbial flora of the Shaanbei white-cashmere goat[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2015. (in Chinese)

[35]
LENG J, XIE L J, ZHU R J, et al. Dominant bacterial communities in the rumen of Gayals (Bos frontalis),yaks (Bos grunniens) and Yunnan yellow cattle (Bos taurs) revealed by denaturing gradient gel electrophoresis[J]. Molecular Biology Reports, 2011, 38(8):4863-4872.

DOI

[36]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

DOI

[37]
任伟忠, 李妍, 曹玉凤, 等. 不同比例全株玉米青贮、谷草和羊草组合饲粮对干奶前期奶牛体况、瘤胃发酵和血液生化指标的影响[J]. 中国兽医学报, 2020, 40(5):1009-1016.

REN W Z, LI Y, CAO Y F, et al. Effects of different dietary ratios of whole corn silage,millet straw and Leymus chinensis on body condition,rumen fermentation and blood biochemical parameters of cows in the early stage of dry period[J]. Chinese Journal of Veterinary Science, 2020, 40(5):1009-1016. (in Chinese)

[38]
PITTA D W, PINCHAK W E, DOWD S, et al. Longitudinal shifts in bacterial diversity and fermentation pattern in the rumen of steers grazing wheat pasture[J]. Anaerobe, 2014, 30:11-17.

DOI PMID

[39]
JIANG X, MA G M, CUI Z Q, et al. Effects of fermented corn gluten meal on growth performance,plasma metabolites,rumen fermentation and bacterial community of Holstein calves during the pre-weaning period[J]. Livestock Science, 2020, 231:103866.

DOI

[40]
李勇. 两种不同物理形态开食料对羔羊生长和瘤胃发育的影响及其机制研究[D]. 博士学位论文. 兰州: 甘肃农业大学, 2020.

LI Y. Effects of starter feeds of two different physical forms on growth and rument development of lambs and its mechanisms[D]. Ph.D.Thesis. Lanzhou: Gansu Agricultural University, 2020. (in Chinese)

[41]
AHMAD A A, YANG C, ZHANG J, et al. Effects of dietary energy levels on rumen fermentation, microbial diversity, and feed efficiency of yaks (Bos grunniens)[J]. Front Microbiol, 2020, 11:625.

DOI

[42]
BEKELE A Z, KOIKE S, KOBAYASHI Y. Genetic diversity and diet specificity of ruminal Prevotella revealed by 16S rRNA gene-based analysis[J]. FEMS Microbiology Letters, 2010, 305(1):49-57.

DOI

[43]
FLINT H J, DUNCAN S H. Bacteroides and Prevotella[M]// BATT C A,TORTORELLO M L. Encyclopedia of food microbiology. 2nd ed. Amsterdam: Academic Press, 2014:203-208.

[44]
SOMMAI S, AMPAPON T, MAPATO C, et al. Replacing soybean meal with yeast-fermented cassava pulp (YFCP) on feed intake,nutrient digestibilities,rumen microorganism,fermentation,and N-balance in Thai native beef cattle[J]. Tropical Animal Health and Production, 2020, 52(4):2035-2041.

DOI

[45]
DE SANT’ANA A S, RIBEIRO SILVA A P, DO NASCIMENTO S P O, et al. Tannin as a modulator of rumen microbial profile,apparent digestibility and ingestive behavior of lactating goats:a preliminary metagenomic view of goats adaptability to tannin[J]. Research in Veterinary Science, 2022, 145:159-168.

DOI

[46]
朱靖, 林红, 裴明财, 等. 辣椒碱对泌乳前期奶牛产奶性能、血清生化指标、瘤胃微生物及代谢组的影响[J]. 动物营养学报, 2021, 33(11):6290-6299.

DOI

ZHU J, LIN H, PEI M C, et al. Effects of capsaicin on milk performance,serum biochemical indices,rumen microorganism and metabonomic in early lactation dairy cows[J]. Chinese Journal of Animal Nutrition, 2021, 33(11):6290-6299. (in Chinese)

[47]
SAMAL L, CHAUDHARY L C, AGARWAL N, et al. Effects of plants containing secondary metabolites as feed additives on rumen metabolites and methanogen diversity of buffaloes[J]. Animal Nutrition and Feed Technology, 2015, 15(3):427-437.

DOI

[48]
李世歌, 陈光吉, 李小冬, 等. 杂交构树青贮对务川白山羊瘤胃微生物区系的影响[J]. 中国饲料, 2022(1):114-120.

LI S G, CHEN G J, LI X D, et al. Effects of hybrid Broussonetia papyrifera silage on rumen microflora of Wuchuan white goat[J]. China Feed, 2022(1):114-120. (in Chinese)

[49]
SARNATARO C, SPANGHERO M. In vitro rumen fermentation of feed substrates added with chestnut tannins or an extract from Stevia rebaudiana Bertoni[J]. Animal Nutrition, 2020, 6(1):54-60.

DOI

[50]
ZHANG R Y, JIN W, FENG P F, et al. High-grain diet feeding altered the composition and functions of the rumen bacterial community and caused the damage to the laminar tissues of goats[J]. Animal, 2018, 12(12):2511-2520.

DOI PMID

[51]
胡晓宇. 奶牛瘤胃菌群紊乱与乳腺炎的关联性及机制研究[D]. 博士学位论文. 长春: 吉林大学, 2020.

HU X Y. The correlation and mechanism between rumen microbiota disturbance and mastitis in dairy cows[D]. Ph.D.Thesis. Changchun: Jilin University, 2020. (in Chinese)

文章导航

/