研究论文

黄曲霉毒素B1激活核转录因子-κB信号通路引起牛乳腺上皮细胞发生炎性反应

  • 任晓丽 ,
  • 皇甫和平 ,
  • 王军 ,
  • 靳双星 ,
  • 王俊东 ,
  • 石冬梅 , *
展开
  • 河南牧业经济学院动物医药学院,郑州市动物营养代谢病与中毒病重点实验室,郑州 450046
* 石冬梅,教授,硕士生导师,E-mail:

任晓丽(1983—),女,河南安阳人,讲师,博士,主要从事动物疾病诊疗研究。E-mail:

Office editor: 菅景颖

收稿日期: 2022-11-11

  网络出版日期: 2023-07-11

基金资助

河南省科技攻关项目(222102110110)

河南省科技攻关项目(212102110377)

河南省教育厅重点科研项目(22B230004)

河南牧业经济学院校级重点学科建设项目(XJXK202202)

Aflatoxin B1 Induces Inflammatory Response of Bovine Mammary Epithelial Cells by Activating Nuclear Transcription Factor-κB Signaling Pathway

  • REN Xiaoli ,
  • HUANGFU Heping ,
  • WANG Jun ,
  • JIN Shuangxing ,
  • WANG Jundong ,
  • SHI Dongmei , *
Expand
  • Zhengzhou Key Laboratory of Animal Nutritional Metabolic and Poisoning Diseases, College of Veterinary Medicine, Henan University of Animal Husbandry of Economy, Zhengzhou 450046, China
* professor, E-mail:

Received date: 2022-11-11

  Online published: 2023-07-11

摘要

本试验旨在研究不同浓度黄曲霉毒素B1(AFB1)对牛乳腺上皮细胞(MAC-T细胞)中核转录因子-κB(NF-κB)信号通路介导的炎症反应的影响。向MAC-T细胞中分别加入不同浓度的AFB1处理培养液培养24 h,分析AFB1对MAC-T细胞活力、乳酸脱氢酶(LDH)活性、促炎细胞因子含量和基因表达以及NF-κB信号通路相关蛋白表达的影响。结果显示:1)与对照组相比,2.5、5.0、10.0和20.0 μmol/L AFB1处理MAC-T细胞均能显著或极显著降低细胞活力(P<0.05或P<0.01),显著或极显著升高培养上清液中乳酸脱氢酶(LDH)活性(P<0.05或P<0.01),且呈剂量依赖性。2)与对照组(0 μmol/L AFB1)相比,5.0、10.0和20.0 μmol/L AFB1处理MAC-T细胞使上清液中白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、肿瘤坏死因子-α(TNF-α)的含量显著或极显著升高(P<0.05或P<0.01);5.0 μmol/L AFB1处理使MAC-T细胞中IL-1βIL-8和TNF-α mRNA的相对表达量显著或极显著升高(P<0.05),10.0 μmol/L AFB1处理使MAC-T细胞中IL-1βIL-6、IL-8和TNF-α mRNA的相对表达量显著或极显著升高(P<0.01),20.0 μmol/L AFB1处理使MAC-T细胞中IL-1βIL-6、IL-8和TNF-α mRNA的相对表达量极显著升高(P<0.01)。3)与对照组相比,10.0和20.0 μmol/L AFB1处理使MAC-T细胞中磷酸化P65(p-P65)、磷酸化核转录因子-κB抑制因子α(p-IκBα)蛋白的相对表达量极显著升高(P<0.01)。上述结果提示,AFB1通过促进炎症相关因子表达和激活NF-κB信号通路,引起MAC-T细胞发生炎性反应。

本文引用格式

任晓丽 , 皇甫和平 , 王军 , 靳双星 , 王俊东 , 石冬梅 . 黄曲霉毒素B1激活核转录因子-κB信号通路引起牛乳腺上皮细胞发生炎性反应[J]. 动物营养学报, 2023 , 35(7) : 4587 -4595 . DOI: 10.12418/CJAN2023.426

Abstract

This study aimed to investigate the effects of different concentrations of aflatoxin B1 (AFB1) on inflammation response mediated by nuclear transcription factor-κB (NF-κB) signaling pathway in bovine mammary epithelial cells (MAC-T cells). The MAC-T cells were treated with AFB1 at different concentrations for 24 h. The effects of AFB1 on the cell viability, the lactic dehydrogenase (LDH) activity, the contents and gene expression of inflammatory cytokines, and the expression of NF-κB signaling pathway related proteins in MAC-T cells were analyzed. The results showed as follows: 1) compared with the control group (0 μmol/L AFB1), the MAC-T cells treated with 2.5, 5.0, 10.0 and 20.0 μmol/L AFB1 could significantly or extremely significantly reduce the cell viability and increase the LDH activity in culture supernatant in a dose-dependent manner (P<0.05 or P<0.01). 2) Compared with the control group, the contents of interleukin-1β (IL-1β), interleukin-6 (IL-6), interleukin-8 (IL-8) and tumor necrosis factor-α (TNF-α) in the culture supernatant of MAC-T cells treated with 5.0, 10.0 and 20.0 μmol/L AFB1 were significantly or extremely significantly increased (P<0.05 or P<0.01); moreover, the mRNA relative expression levels of IL-1β, IL-8 and TNF-α in MAC-T cells treated with 5.0 μmol/L AFB1 were significantly or extremely significantly increased (P<0.05 or P<0.01), the mRNA relative expression levels of IL-1β, IL-6, IL-8 and TNF-α in MAC-T cells treated with 10.0 μmol/L AFB1 were significantly or extremely significantly increased (P<0.05 or P<0.01), and the mRNA relative expression levels of IL-1β, IL-6, IL-8 and TNF-α in MAC-T cells treated with 20.0 μmol/L AFB1 were extremely significantly increased (P<0.01). 3) Compared with the control group, the protein relative expression levels of phosphorylated-P65 (p-P65) and phosphorylated inhibitor α of NF-κB (p-IκBα) in MAC-T cells treated with 10.0 and 20.0 μmol/L AFB1 were extremely significantly increased (P<0.01). In conclusion, AFB1 induces inflammatory response of MAC-T cells by promoting expression of inflammation related factors and activating NF-κB signaling pathway.

天然真菌毒素引起的食品污染是农业和食品工业长期存在的严重问题之一。黄曲霉毒素是由黄曲霉和寄生曲霉菌产生的最重要的真菌毒素,是玉米、花生和大米等动物饲料中最常见的谷物污染物之一[1-2]。其中黄曲霉毒素B1(aflatoxin B1,AFB1)的毒性最大,已被国际癌症研究机构(IARC)列为Ⅰ类致癌物[3]。AFB1对任何动物都不存在安全剂量,奶牛饲粮中存在的AFB1会导致肝脏、肾脏和其他器官损伤,降低饲粮的摄入量,损伤机体免疫功能,严重影响奶牛的生长性能和产奶性能,还会引起各种奶牛疾病并发症。
乳腺上皮细胞在奶牛产奶过程中起着关键作用,当真菌毒素进入机体后,对乳腺上皮细胞的生长有副作用,影响机体的免疫功能,损害乳腺细胞的泌乳能力,从而降低乳的合成量和质量;对黄曲霉毒素的早期研究表明,摄入黄曲霉毒素后,奶牛乳腺中的AFB1含量仅次于肾脏和肝脏[4]。研究表明,AFB1对多种细胞产生细胞毒性,介导细胞免疫,显著降低T细胞、B细胞和巨噬细胞等多种免疫细胞的活化,导致免疫系统的抑制,降低接种疫苗的保护作用[5-6];AFB1可引起自然杀伤(natural killer,NK)细胞溶解和巨噬细胞功能降低,如吞噬活性、细胞内杀伤和氧化自由基的产生[7]。核转录因子-κB(nuclear transcription factor-κB,NF-κB)是一类重要的二聚体核转录因子,在调控炎症反应、免疫调节、转移功能等不同的细胞机制中发挥重要作用,NF-κB有2个亚基:P65和核转录因子-κB抑制因子α(inhibitor α of NF-κB,IκBα),在正常生理条件下,NF-κB在细胞质中以非活性形式存在,并与其抑制性蛋白IκBα相关,IκBα是NF-κB的结合结构域,可阻止NF-κB核定位;在对任何刺激的反应中,IκBα/NF-κB复合物被分解,导致IκBα的降解和NF-κB被激活并释放,NF-κB转移到细胞核结合特定的DNA序列,激活促炎细胞因子的分泌和基因的转录,如白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-6(interleukin-6,IL-6)、白细胞介素-8(interleukin-8,IL-8)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)等,引起炎症反应的发生[8-9]
霉菌毒素污染的青贮饲料可导致奶牛中毒综合征[10]。影响奶牛产奶质量和数量的各种不利因素是值得注意和研究的。乳腺上皮细胞是抵御有害物质侵入乳腺的第1道防线。然而,关于AFB1对乳腺上皮细胞的影响及其毒性后果的研究很少。MAC-T细胞作为牛乳腺上皮细胞的研究模型,已被用于许多体外研究[11]。因此,本试验主要研究AFB1对MAC-T细胞活力、促炎细胞因子分泌和基因表达,以及NF-κB信号通路相关蛋白表达的影响,旨在揭示AFB1对牛乳腺上皮细胞的影响及分子机制。

1 材料与方法

1.1 试验材料与仪器设备

AFB1、3-(4,5-二甲基噻唑-2)-2,5-二苯基四氮唑溴盐[MTT]、二甲基亚砜(dimethyl sulfoxide,DMSO)购自Sigma公司;胎牛血清(fetal bovine serum,FBS)、青-链霉素、胰蛋白酶、DMEM/F12高糖培养基购自Gibco公司,IL-1β、IL-6、IL-8和TNF-α试剂盒购自南京建成生物工程研究所;磷酸化P65(p-P65)、P65、磷酸化IκBα(p-IκBα)和IκBα购自Cell Signaling Technology公司;辣根过氧化物酶(horseradish peroxidase,HRP)标记山羊抗兔IgG、β-肌动蛋白(β-actin)购自北京中杉金桥公司;反转录试剂盒、荧光定量PCR试剂盒购自日本TaKaRa公司;细胞培养箱、全自动酶标仪购自美国Thermo公司;荧光定量PCR仪购自美国ABI公司。

1.2 检测指标与方法

1.2.1 细胞培养

将复苏的MAC-T细胞(购自中科院上海细胞库)用DMEM/F12完全培养基(配制比例为:89% DMEM/F12、10%胎牛血清、1%双抗)重悬后,将细胞接种于25 cm2的培养瓶中(Corning公司,美国),于37 ℃、5% CO2培养箱中培养,24 h换液1次,待细胞融合至80%,采用0.25%胰蛋白酶消化、传代,常规培养。

1.2.2 MTT法检测细胞活力

取对数生长期的MAC-T细胞,按照细胞浓度为5×10⁴个/mL接入96孔板,每孔100 μL,细胞融合度达到80%时,去除培养上清液,分别加入含不同浓度[0(对照组)、2.5、5.0、10.0、20.0 μmol/L]AFB1的无血清培养液,同时设空白对照组,继续培养细胞24 h,每孔加入20 μL MTT溶液,继续培养4 h后,加入150 μL DMSO,置于摇床上低速振荡10 min,使结晶物溶解,利用酶标仪在490 nm处检测各孔的吸光度(OD)值,按照下式计算细胞活力:
细胞活力(%)=[(试验组OD值-空白对照组OD值)/(对照组OD值-空白对照组OD值)]×100。

1.2.3 乳酸脱氢酶(lactic dehydrogenase,LDH)活性的测定

取对数生长期的MAC-T细胞,按照细胞浓度为2×10⁵个/mL接入12孔板,待细胞贴壁生长至80%左右时,给予含不同浓度[0(对照组)、5.0、10.0、20.0 μmol/L]AFB1的无血清培养液继续培养24 h后,收集培养上清液,按照试剂盒说明书中的步骤检测上清液中的LDH活性。

1.2.4 细胞因子含量的检测

取对数生长期的MAC-T细胞,以2×10⁴个/mL的浓度接种于24孔板中,待细胞贴壁生长至80%左右时,用含不同浓度[0(对照组)、5.0、10.0、20.0 μmol/L]AFB1的无血清培养液继续培养24 h后,收集培养上清液,采用酶联免疫吸附试验(ELISA)法检测上清液中炎症相关因子(IL-1β、IL-6、IL-8和TNF-α)的含量,按照试剂盒说明书进行操作。

1.2.5 细胞因子mRNA相对表达量的检测

取经不同浓度[0(对照组)、5.0、10.0、20.0 μmol/L]AFB1处理的MAC-T细胞,利用Trizol试剂提取细胞中的总RNA,根据PrimeScriptTM RT Reagent Kit with gDNA Eraser (Perfect Real Time)逆转试剂盒说明书,将RNA逆转录为cDNA,-20 ℃保存。以反转录产物cDNA为模板,按照TB Green® Premix Ex TaqTM Ⅱ试剂盒说明书,采用两步法PCR扩增标准程序检测MAC-T细胞中IL-1βIL-6、IL-8和TNF-α mRNA的相对表达量,反应程序为:95 ℃ 3 s预变性,95 ℃ 5 s变性;60 ℃ 34 s延伸;40个循环。所用引物由上海生物工程有限公司合成,引物序列如表1所示。以β-actin作为内参基因,目的基因的mRNA相对表达量用2-△△Ct法计算。
表1 引物序列

Table 1 Primer sequences

基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物大小
Product length/bp
登录号
Accessions No.
β-肌动蛋白
β-actin
F:CCATCGGCAATGAGCGGTTCC
R:CGTGTTGGCGTAGAGGTCCTTG
146 NM_173979.3
白细胞介素-6
IL-6
F:GCCTTCACTCCATTCGCTGTCTC
R:AAGTAGTCTGCCTGGGGTGGTG
117 NM_173923.1
白细胞介素-8
IL-8
F:GCTGGCTGTTGCTCTCTTGGC
R:GGGGTGGAAAGGTGTGGAATGTG
127 NM_173925.2
肿瘤坏死因子-α
TNF-α
F:CTGGCGGAGGAGGTGCTCTC
R:GGAGGAAGGAGAAGAGGCTGAGG
85 NM_173966.3
白细胞介素-1β
IL-1β
F:ATGAAGAGCTGCATCCAACACCTG
R:ACCGACACCACCTGCCTGAAG
110 NM_174093.1

1.2.6 NF-κB信号通路相关蛋白相对表达量的检测

采用蛋白质免疫印迹(Western blot)方法检测MAC-T细胞中NF-κB信号通路中P65、p-P65、IκBα、p-IκBα蛋白的表达。在经不同浓度AFB1处理的MAC-T细胞中加入RIPA裂解液,置于4 ℃冰箱裂解30 min,使其充分裂解,4 ℃、12 000 r/min离心15~20 min,收集上清液于1.5 mL的EP管中。利用BCA试剂盒检测上清液中蛋白质的浓度,通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)方法分离蛋白,根据相应蛋白分子质量大小切胶,将目的蛋白应用湿转法转膜到PVDF膜上,5%TBST封闭2 h,一抗(P65、p-P65、IκBα、p-IκBα 1∶750,β-actin 1∶2 000)孵育过夜,根据一抗种属来源不同,选用相应的HRP标记的山羊抗兔抗体或HRP标记的山羊抗鼠二抗孵育2 h,TBST洗涤3次,15 min/次,接着用超强型电化学发光剂显色,曝光拍照,使用Image J软件进行灰度值分析,计算目的蛋白的相对表达量,以β-actin为内参蛋白。

1.3 数据处理与统计分析

所有试验数据以平均值±标准差表示,采用GraphPad Prism 5.0软件进行单因素方差分析(one-way ANOVA)及作图,P>0.05表示差异不显著,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 AFB1对MAC-T细胞的细胞毒性的影响

为了确定AFB1对MAC-T细胞的细胞毒性的影响,用不同浓度的AFB1处理MAC-T细胞24 h后检测细胞活力和细胞培养上清液LDH活性。如图1-A所示,随着AFB1浓度的增加,细胞活力降低,呈剂量依赖性;与对照组相比,2.5 μmol/L AFB1处理MAC-T细胞使细胞活力显著降低(P<0.05),5.0、10.0、20.0 μmol/L AFB1处理MAC-T细胞使细胞活力极显著降低(P<0.01)。如图1-B所示,随着AFB1浓度的增加,培养上清液中LDH活性升高,呈剂量依赖性;与对照组相比,2.5 μmol/L AFB1处理MAC-T细胞使培养上清液中LDH的活性显著升高(P<0.05),5.0、10.0、20.0 μmol/L AFB1处理MAC-T细胞使培养上清液中LDH的活性极显著升高(P<0.01)。
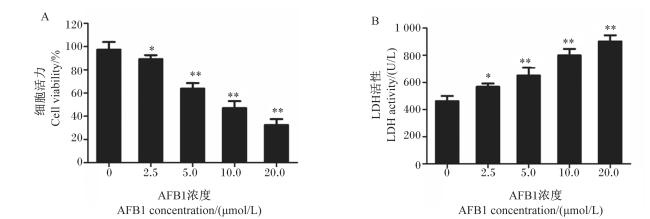
图1 AFB1对MAC-T细胞活力和LDH活性的影响

数据柱标注*表示与对照组差异显著(P<0.05),标注**表示与对照组差异极显著(P<0.01)。下图同。

Fig.1 Effects of AFB1 on cell viability and LDH activity of MAC-T cells

Data column with * mean significant difference compared with the control group (P<0.05), and with ** mean extremely significant difference compared with the control group (P<0.01). The same as below.

2.2 AFB1对MAC-T细胞中促炎细胞因子分泌和表达的影响

ELISA检测结果(图2-A)显示,随着AFB1浓度的增加,培养上清液中促炎细胞因子IL-1β、IL-6、IL-8和TNF-α的含量逐渐升高,呈剂量依赖性;与对照组相比,经5.0 μmol/L AFB1处理后,MAC-T细胞培养上清液中IL-1β、IL-6、IL-8和TNF-α的含量显著升高(P<0.05);经10.0、20.0 μmol/L AFB1处理后,MAC-T细胞培养上清液中IL-1β、IL-6、IL-8和TNF-α的含量极显著升高(P<0.01)。
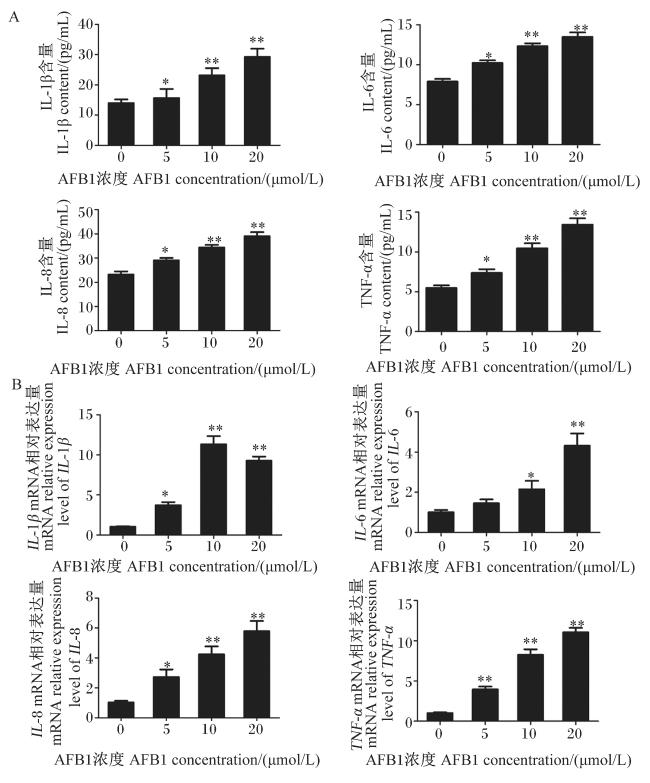
图2 AFB1对MAC-T细胞中促炎细胞因子分泌和表达的影响

A:培养上清液中IL-1β、IL-6、IL-8和TNF-α的含量;B:MAC-T细胞中IL-1βIL-6、IL-8和TNF-α mRNA的相对表达量。

Fig.2 Effects of AFB1 on secretion and mRNA expression of proinflammatory cytokines in MAC-T cells

A: the contents of IL-1β, IL-6, IL-8 and TNF-α in culture supernatant; B: the mRNA relative expression levels of IL-1β, IL-6, IL-8 and TNF-α in MAC-T cells.

PCR检测结果(图2-B)显示,与对照组相比,5.0 μmol/L AFB1处理MAC-T细胞使细胞中TNF-α mRNA的相对表达量极显著升高(P<0.01),IL-1βIL-8 mRNA的相对表达量显著升高(P<0.05),IL-6 mRNA的相对表达量有所上升但差异不显著(P>0.05);10.0 μmol/L AFB1处理MAC-T细胞使细胞中IL-1βIL-8和TNF-α mRNA的相对表达量极显著升高(P<0.01),IL-6 mRNA的相对表达量显著升高(P<0.05);20.0 μmol/L AFB1处理MAC-T细胞使细胞中IL-1βIL-6、IL-8和TNF-α mRNA的相对表达量极显著升高(P<0.05)。以上结果表明AFB1能促进MAC-T细胞中促炎细胞因子IL-1β、IL-6、IL-8和TNF-α的分泌和表达。

2.3 AFB1对MAC-T细胞NF-κB通路相关蛋白表达的影响

图3可知,随着AFB1浓度的增加,p-P65、p-IκBα蛋白的相对表达量呈逐渐上升趋势;与对照组相比,5.0 μmol/L AFB1处理MAC-T细胞使细胞中p-P65、p-IκBα蛋白的相对表达量稍有升高,但差异不显著(P>0.05);10.0和20.0 μmol/L AFB1处理MAC-T细胞使细胞中p-P65、p-IκBa蛋白的相对表达量极显著升高(P<0.01)。
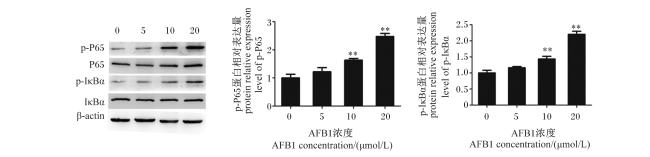
图3 AFB1对MAC-T细胞NF-κB信号通路相关蛋白表达的影响

p-P65:磷酸化P65 phosphorylated-P65;IκBα:核转录因子-κB抑制因子α inhibitor α of NF-κB;p-IκBα:磷酸化核转录因子-κB抑制因子α phosphorylated-inhibitor α of NF-κB;β-actin:β-肌动蛋白。

Fig.3 Effects of AFB1 on expression of NF-κB signaling pathway related proteins in MAC-T cells

3 讨论

AFB1是一种通过乳腺途径排泄的真菌毒素,主要作为其羟化代谢物AFM1,通过产奶动物血乳屏障时发生代谢转化,会影响乳中母体分子和/或其代谢物的质-定量消除模式,产生有毒代谢产物,导致乳腺组织损伤和对牛奶消费者的健康问题[12-13]
研究表明,AFB1在体外和体内都具有遗传毒性,因为它能抑制细胞活力,AFB1的浓度和时间依赖性的细胞毒性已在几种细胞系中检测到,细胞类型不同其敏感性不同[14-15]。体外研究发现,乳腺在AFB1代谢物的产生中扮演着潜在的角色,AFB1在牛乳腺上皮细胞(BME-UV1细胞)中进行生物代谢转化为黄曲霉毒素M1(aflatoxin M1,AFM1)及其他代谢产物,与对照细胞相比,随着AFB1浓度的增加,呈时间和浓度依赖性降低细胞活力[24和48 h的半数致死浓度(LC50)分别为687和180 nmol/L],产生细胞毒性效应,BME-UV1细胞中AFM1的产生量与AFB1浓度和培养时间成正比[16]。另一项研究使用不同浓度(2、4、8 μmol/L)的AFB1对体外培养BME-UV1细胞的代谢活性进行评价,分别处理4、8、12、24 h后,显示AFM1的产生量呈剂量和时间依赖性,在暴露16和24 h后,8 μmol/L AFB1组观察到显著的细胞毒性[17]。与以上研究结果相似,在本试验中,通过MTT法测定了经不同浓度(0、2.5、5.0、10.0和20.0)AFB1处理的MAC-T细胞的细胞毒性,发现2.5~20.0 μmol/L AFB1对MAC-T细胞具有剂量依赖性的细胞毒性作用,显著或极显著降低了细胞活力,使培养上清液中LDH活性显著或极显著增加,进一步证实AFB1对乳腺上皮细胞的损伤,致使细胞膜的通透性改变。由于奶牛产奶量与乳腺上皮细胞数量直接相关,那么AFB1导致的乳腺上皮细胞数量的减少将会减少产奶量,这将有助于解决动物饲料的主要污染物AFB1对奶牛产奶数量和质量的毒性影响。
众所周知,IL-1β、IL-6、IL-8和TNF-α是乳腺细胞炎症反应过程中的重要炎症因子,其含量的高低反映了乳腺细胞炎症的损伤程度。血液中TNF-α、IL-6和IL-1β含量的升高与全身炎症和免疫功能受损有关,促炎细胞因子(如TNF-α、IL-6和IL-1β)作为细胞间化学信使参与调节乳腺免疫反应[18]。季度牛奶检测中IL-6含量的增加被认为是奶牛患乳腺炎症的一个重要指标[19]。脱氧雪腐镰刀菌烯醇(deoxynivalenol,DON)上调MAC-T细胞中TNF-α、环氧合酶-2(COX-2)、IL-1βIL-6和IL-8 mRNA的表达,引起炎症反应[20];T2毒素能诱导猪空肠上皮细胞(IPEC-J2细胞)中TNF-αIL-6和IL-10 mRNA的相对表达量增加[21]。与上述研究结果相似,本试验结果表明,经不同浓度AFB1处理后,MAC-T细胞中促炎细胞因子IL-1β、IL-6、IL-8和TNF-α分泌增加,IL-1βIL-6、IL-8和TNF-α mRNA相对表达量升高。这些结果表明,AFB1可以促进MAC-T细胞中促炎细胞因子的释放和表达。
NF-κB信号通路参与调控多种基因的表达,被认为是细胞炎症反应和先天免疫反应的关键调节通路,NF-κB是维持乳腺在内的一些正常上皮组织的功能所必需的,乳腺中NF-κB活性在妊娠期升高,哺乳期降低,乳腺退化期再次升高,这一模式显示了NF-κB在乳腺妊娠期(增殖期)和退化期(凋亡期)的对照调节作用[22]。NF-κB活化依赖于NF-κB抑制蛋白(IκB)的降解,当细胞受到刺激时,抑制IκB激酶β(IKKβ)迅速被激活,导致细胞质抑制剂IκBα的磷酸化、泛素化和蛋白酶体介导的降解,释放P65/P50,并转移到细胞核中,与靶基因的启动子区域结合导致促炎细胞因子的转录[23-24]。对基因工程小鼠的研究表明,NF-κB活化在乳腺中被特异性阻断时,触发NF-κB信号通路激活,诱导乳腺中促炎基因的转录,乳腺组织的炎症反应损害了泌乳能力,小鼠表现出严重的泌乳不足,从而降低了乳的合成量和质量[25]。另有研究发现霉菌毒素对动物乳腺及其他脏器有严重影响,如DON上调MAC-T细胞中NF-κB P65、NF-κB P50、MyD88的mRNA表达,诱导炎症反应[20];T2毒素通过激活IPEC-J2细胞中NF-κB蛋白的表达,促进炎症因子TNF-αIL-6和IL-10 mRNA的相对表达量增加,引起炎性反应[21]。AFB1剂量依赖性地促进BV2小神经胶质细胞中磷酸化NF-κB(p-NF-κB)蛋白的表达,8 μmol/L AFB1组p-NF-κB的蛋白相对表达量较对照组显著升高了2倍[26]。与上述研究结果一致,在本试验中,不同浓度的AFB1处理MAC-T细胞24 h后,显著增加细胞中p-P65、p-IκBα蛋白的表达,激活了细胞中促炎性细胞因子TNF-α、IL-8、IL-6和IL-1β的分泌和基因转录。上述结果表明,AFB1破坏乳腺上皮细胞屏障,激活NF-κB蛋白的表达,诱导牛乳腺上皮细胞释放细胞因子,发生炎性反应,从而导致奶牛的产奶量下降。活化的NF-κB在AFB1处理的乳腺上皮细胞中传递到细胞核并激活转录程序的具体机制仍有待阐明。需要注意的是,AFB1很容易通过被污染的牛奶转移到人类的食物链中,在很长一段时间内会对人类健康造成类似的影响。

4 结论

AFB1通过激活MAC-T细胞中NF-κB信号通路的活性,促进炎症相关因子的分泌和基因转录,引起MAC-T细胞发生炎性反应。

感谢河南牧业经济学院河南省非常规饲料资源创新利用重点实验室团队成员对于本研究技术、仪器设备等给予的帮助。

[1]
JIANG Y, JOLLY P E, ELLIS W O, et al. Aflatoxin B1 albumin adduct levels and cellular immune status in Ghanaians[J]. International Immunology, 2005, 17(6):807-814.

PMID

[2]
MOHAMMADI A, MEHRZAD J, MAHMOUDI M, et al. Environmentally relevant level of aflatoxin B1 dysregulates human dendritic cells through signaling on key toll-like receptors[J]. International Journal of Toxicology, 2014, 33(3):175-186.

PMID

[3]
GOURAMA H, BULLERMAN L B. Aspergillus flavus and Aspergillus parasiticus:aflatoxigenic fungi of concern in foods and feeds:a review[J]. Journal of Food Protection, 1995, 58(12):1395-1404.

DOI

[4]
STUBBLEFIELD R D, PIER A C, RICHARD J L, et al. Fate of aflatoxins in tissues,fluids,and excrements from cows dosed orally with aflatoxin B1[J]. American Journal of Veterinary Research, 1983, 44(9):1750-1752.

[5]
VENTURINI M C, PERFUMO C J, RISSO M A, et al. Effect of aflatoxin B1 on resistance induced by Bordetella bronchiseptica vaccine in rabbits[J]. Veterinary Microbiology, 1990, 25(2/3):209-216.

DOI

[6]
HAYDEN M S, GHOSH S. Shared principles in NF-kappaB signaling[J]. Cell, 2008, 132(3):344-362.

DOI PMID

[7]
GHOSH R C, CHAUHAN H V, JHA G J. Suppression of cell-mediated immunity by purified aflatoxin B1 in broiler chicks[J]. Veterinary Immunology and Immunopathology, 1991, 28(2):165-172.

PMID

[8]
SEEGERS H, FOURICHON C, BEAUDEAU F. Production effects related to mastitis and mastitis economics in dairy cattle herds[J]. Veterinary Research, 2003, 34(5):475-491.

DOI PMID

[9]
AKHTAR M, GUO S, GUO Y F, et al. Upregulated-gene expression of pro-inflammatory cytokines (TNF-α,IL-1β and IL-6) via TLRs following NF-κB and MAPKs in bovine mastitis[J]. Acta Tropica, 2020, 207:105458.

DOI

[10]
FINK-GREMMELS J. The role of mycotoxins in the health and performance of dairy cows[J]. Veterinary Journal, 2008, 176(1):84-92.

DOI

[11]
ZHOU Y F, JIN Y C, YU H, et al. Resveratrol inhibits aflatoxin B1-induced oxidative stress and apoptosis in bovine mammary epithelial cells and is involved the Nrf2 signaling pathway[J]. Toxicon, 2019, 164:10-15.

DOI PMID

[12]
吴坤坦, 齐德生. 黄曲霉毒素B1在乳畜中的转化[J]. 饲料工业, 2018, 39(20):59-64.

WU K T, QI D S. Transformation of aflatoxin B1 in dairy animals[J]. Feed Industry, 2018, 39(20):59-64. (in Chinese)

[13]
WU K T, JIA S F, ZHANG J C, et al. Transcriptomics and flow cytometry reveals the cytotoxicity of aflatoxin B1 and aflatoxin M1 in bovine mammary epithelial cells[J]. Ecotoxicology and Environmental Safety, 2021, 209:111823.

DOI

[14]
CLARKE R, CONNOLLY L, FRIZZELL C, et al. Cytotoxic assessment of the regulated,co-existing mycotoxins aflatoxin B1,fumonisin B1 and ochratoxin,in single,binary and tertiary mixtures[J]. Toxicon, 2014, 90:70-81.

DOI

[15]
SUN L H, LEI M Y, ZHANG N Y, et al. Individual and combined cytotoxic effects of aflatoxin B1,zearalenone,deoxynivalenol and fumonisin B1 on BRL 3A rat liver cells[J]. Toxicon, 2015, 95:6-12.

DOI

[16]
GHADIRI S, SPALENZA V, DELLAFIORA L, et al. Modulation of aflatoxin B1 cytotoxicity and aflatoxin M1 synthesis by natural antioxidants in a bovine mammary epithelial cell line[J]. Toxicology in Vitro, 2019, 57:174-183.

[17]
CARUSO M, BELLOLI C, ZAGHINI A, et al. Investigation of the metabolic activity of a bovine mammary epithelial cell line (BME-UV1)[J]. Veterinary Research Communications, 2008, 32(Suppl 1):S259-S262.

[18]
MOYES K M, DRACKLEY J K, MORIN D E, et al. Predisposition of cows to mastitis in non-infected mammary glands:effects of dietary-induced negative energy balance during mid-lactation on immune-related genes[J]. Functional and Integrative Genomics, 2011, 11(1):151-156.

DOI

[19]
SAKEMI Y, TAMURA Y, HAGIWARA K. Interleukin-6 in quarter milk as a further prediction marker for bovine subclinical mastitis[J]. The Journal of Dairy Research, 2011, 78(1):118-121.

DOI

[20]
WANG J M, JIN Y C, WU S L, et al. Deoxynivalenol induces oxidative stress,inflammatory response and apoptosis in bovine mammary epithelial cells[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(6):1663-1674.

DOI

[21]
康瑞芬, 王猛, 沈家鲲, 等. T-2毒素激活活性氧/核转录因子-κB信号通路诱导猪空肠上皮细胞发生炎性反应[J]. 动物营养学报, 2021, 33(1):474-483.

DOI

KANG R F, WANG M, SHEN J K, et al. T-2 toxin induced inflammatory response of intestinal porcine epithelial cells by activating reactive oxygen species/nuclear factor-κB signaling pathway[J]. Chinese Journal of Animal Nutrition, 2021, 33(1):474-483. (in Chinese)

[22]
SAU A, CABRITA M A, PRATT M A C. NF-κB at the crossroads of normal mammary gland biology and the pathogenesis and prevention of BRCA1-mutated breast cancer[J]. Cancer Prevention Research, 2018, 11(2):69-80.

DOI

[23]
BARNES P J, KARIN M. Nuclear factor-kappaB:a pivotal transcription factor in chronic inflammatory diseases[J]. The New England Journal of Medicine, 1997, 336(15):1066-1071.

DOI

[24]
ZANDI E, ROTHWARF D M, DELHASE M, et al. The IkappaB kinase complex (IKK) contains two kinase subunits,IKKalpha and IKKbeta,necessary for IkappaB phosphorylation and NF-kappaB activation[J]. Cell, 1997, 91(2):243-252.

DOI

[25]
CAO Y X, KARIN M. NF-kappaB in mammary gland development and breast cancer[J]. Journal of Mammary Gland Biology and Neoplasia, 2003, 8(2):215-223.

DOI PMID

[26]
ZHOU Y Q, WANG S Y, LUO H L, et al. Aflatoxin B1 induces microglia cells apoptosis mediated by oxidative stress through NF-κB signaling pathway in mice spinal cords[J]. Environmental Toxicology and Pharmacology, 2022, 90:103794.

DOI

文章导航

/