研究论文

二十二碳六烯酸对奶山羊乳腺上皮细胞转录调控机理研究

  • 雷琼 ,
  • 郭宇康 ,
  • 张佳惠 ,
  • 张富 ,
  • 刘维巍 ,
  • 刘庆华 , *
展开
  • 福建农林大学动物科学学院(蜂学学院),福州 350002
* 刘庆华,副教授,硕士生导师,E-mail:

雷 琼(1997—),女,河南方城人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 田艳明

收稿日期: 2022-09-28

  网络出版日期: 2023-07-11

基金资助

福建农林大学项目(KH1700300)

福建农林大学项目(KH180098A)

福建省2022年中央引导地方科技发展资金(2022L3085)

Transcriptional Regulation Mechanism of Docosahexaenoic Acid on Goat Mammary Epithelial Cells

  • LEI Qiong ,
  • GUO Yukang ,
  • ZHANG Jiahui ,
  • ZHANG Fu ,
  • LIU Weiwei ,
  • LIU Qinghua , *
Expand
  • College of Animal Sciences (College of Bee Science), Fujian Agriculture and Forestry University, Fuzhou 350002, China
* associate professor, E-mail:

Received date: 2022-09-28

  Online published: 2023-07-11

摘要

本试验旨在研究二十二碳六烯酸(DHA)对奶山羊乳腺上皮细胞(GMECs)转录调控机理。试验使用不同浓度的DHA(3.125、6.250、12.500、25.000、50.000和100.000 μmol/L)对GMECs进行处理,并测定细胞活力,然后利用转录组测序(RNA-Seq)技术对DHA作用的GMECs进行测序,获得并分析相关基因表达。结果表明:1)与空白对照组(无DHA处理)相比,低浓度DHA(≤25.000 μmol/L)对各时间点GMECs细胞活力无明显抑制作用;当DHA浓度高于50.000 μmol/L时,GMECs细胞活力出现明显下降。在不同时间点,24 h时各浓度DHA处理GMECs细胞活力高于其他时间点。因此,选择处理时间为24 h、DHA浓度为25.000 μmol/L用于后续试验。2)构建DHA在GMECs中作用的RNA文库,获得的碱基质量值≥20的碱基所占百分比(Q20)和碱基质量值≥30的碱基所占百分比(Q30)均在96%以上,鸟嘌呤和胞嘧啶(CG)占比为53%,各个组的比对效率为98.18%~98.43%,表明转录组信息质量较高。3)以|log10[差异倍数(FC)]|>1且P<0.05为筛选标准,共筛选出236个显著差异表达基因(DEGs),其中108个基因表达上调,128个基因表达下调。4)基因本体论(GO)富集分析发现,DEGs主要富集在铁离子结合、聚合细胞骨架纤维、中间丝状体细胞骨架和中间丝状体中,并参与Rho家族鸟苷三磷酸酶(Rho GTPases)、哺乳动物雷帕霉素靶蛋白(mTOR)和Hippo等信号通路的信号转导。5)京都基因和基因组百科全书(KEGG)富集分析发现,DEGs显著富集到视黄醇代谢、谷胱甘肽代谢、亚油酸代谢、化学致癌、药物代谢-细胞色素P450和过氧化物酶体增殖物激活受体(PPAR)信号通路。由此可知,DHA在GMECs的免疫、细胞骨架构建、抗炎、抗癌及代谢等相关通路中具有明显作用,其中亚油酸代谢、PPAR信号通路能够在脂代谢方面发挥作用。

本文引用格式

雷琼 , 郭宇康 , 张佳惠 , 张富 , 刘维巍 , 刘庆华 . 二十二碳六烯酸对奶山羊乳腺上皮细胞转录调控机理研究[J]. 动物营养学报, 2023 , 35(7) : 4617 -4631 . DOI: 10.12418/CJAN2023.429

Abstract

The aim of this experiment was to study the transcriptional regulation mechanism of docosahexaenoic acid (DHA) on goat mammary epithelial cells (GMECs). GMECs were treated with different concentrations of DHA (3.125, 6.250, 12.500, 25.000, 50.000 and 100.000 μmol/L) and cell viability was determined. Then transcriptome sequencing (RNA-Seq) was used to sequence the DHA acting GMECs, and the expression of related genes was obtained and analyzed. The results showed as follows: 1) compared with the blank control group (without DHA treatment), low concentration DHA (≤25.000 μmol/L) had no significant inhibitory effect on GMECs cell viability at all time points; when DHA concentration was higher than 50.000 μmol/L, GMECs cell activity decreased significantly. At different time points, the GMECs cell viability treated with DHA at 24 h was higher than that at the other time points. Therefore, treatment time of 24 h and DHA concentration of 25.000 μmol/L were selected for subsequent test. 2) The RNA library of DHA effects in GMECs was constructed, and the percentage of bases with base mass value≥20 (Q20) and the percentage of bases with base mass value≥30 (Q30) were both over 96%, the proportion of guanine and cytosine (CG) was 53%, and the comparison efficiency of each group was 98.18% to 98.43%, indicating high quality of transcriptome information was obtained. 3) Take |log10[fold change (FC)]|>1 and P<0.05 for screening criteria, a total of 236 differentially expressed genes (DEGs) were screened, among which 108 genes were up-regulated and 128 genes were down-regulated. 4) Gene ontology (GO) enrichment analysis showed that DEGs were mainly enriched in iron ion binding, polymeric cytoskeletal fiber, intermediate filament cytoskeleton and intermediate filament, and also involved in signal transduction of Rho family guanosine triphosphatases (Rho GTPases), mammalian target of rapamycin (mTOR) and Hippo signaling pathways. 5) Kyoto encyclopedia of genes and gnomes (KEGG) enrichment analysis found that DEGs were significantly enriched in retinol metabolism, glutathione metabolism, linoleic acid metabolism, chemical carcinogenesis, drug metabolism-cytochrome P450 and peroxisome proliferator activated receptor (PPAR) signaling pathways. In conclusion, DHA plays a significant role in the immune, cytoskeleton, anti-inflammatory, anti-tumor and metabolic pathways of GMECs, among which linoleic acid metabolism and PPAR signaling pathway can play a role in lipid metabolism.

二十二碳六烯酸(docosahexaenoic acid,DHA)是一种具有很强生物学活性的多不饱和脂肪酸(polyunsaturated fatty acid,PUFA),具有抗癌、抗肿瘤、抗炎以及改善脑细胞和视力发育等生物功能,对预防和缓解心血管疾病也有积极影响。DHA可通过调节前列腺素作用和降低血液中甘油三酯(TG)的含量,减少人类疾病的发生[1]。人体自身合成DHA有限,一般通过饮食获取所需DHA。世界卫生组织(WHO)和美国国立卫生研究院(NIH)将健康成年人每天的DHA摄入量设定为220 mg,但目前许多国家和地区大多数人口的实际DHA摄入量远低于该水平[2-3]
近年来,乳腺上皮细胞(mammary epithelial cells,MECs)被作为一种理想的试验模型用来研究乳腺泌乳机制,并能够验证乳腺组织中基因表达载体构建是否有效[4]。郭丹[5]利用构建过表达载体及合成干扰RNA等方法,研究miR-21-5p和程序性细胞死亡因子4(PDCD4)对奶山羊乳腺上皮细胞(goat mammary epithelial cells,GMECs)增殖、凋亡和泌乳的调控作用;潘坛[6]通过克隆、构建过表达载体及干扰RNA,运用PCR和Western Blot技术探究Tribbles假激酶3(TRIB3)基因对GMECs乳脂代谢调控的机制,为奶山羊乳品质的提高奠定了理论依据。转录组测序(RNA-Seq)技术旨在研究解释基因组关键功能的输出,以确定特定条件或疾病状态下细胞或组织基因表达的变化[7-8]。近年来,RNA-Seq技术不仅有助于构建基因文库,还有助于我们更好地理解反刍动物发育、适应性进化、宿主免疫反应和应激反应等各项生物过程[9]。本试验采用RNA-Seq技术,对相关通路及基因进行分析研究,以期阐明DHA对GMECs生物组学的影响,为奶山羊的营养研究提供参考。

1 材料与方法

1.1 试验材料

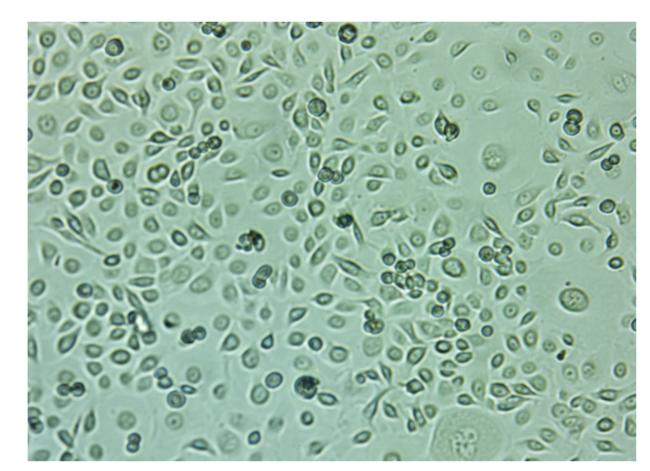
本试验采用购自赛百慷(上海)生物技术股份有限公司的泌乳盛期永生化GMECs,传代培养4~6代后发现,细胞密集生长状态下呈典型的鹅卵石或铺路石样,符合GMECs细胞形态特征(图1);纯品DHA由厦门汇盛生物有限公司提供,其中DHA纯度为98%。
图1 GMECs细胞形态

Fig.1 Cellular morphology of GMECs (100×)

1.2 试验方法

1.2.1 细胞活力的测定

以92% iCell原代上皮细胞基础培养基、6%胎牛血清(FBS)、1%上皮细胞添加剂和1%青链霉素混合液作为细胞培养试剂[iCell原代上皮细胞基础培养基、FBS、原代上皮细胞培养添加剂购自赛百慷(上海)生物技术股份有限公司,青链霉素混合液购自苏州新赛美生物科技有限公司]。将GMECs接种于96孔板,待细胞融合度至80%左右时,更换含有不同浓度DHA的培养基,DHA添加组的DHA浓度分别为3.125、6.250、12.500、25.000、50.000和100.000 μmol/L,并设置空白对照组(无DHA处理),每组6个重复;分别孵育6、12、24和48 h,孵育后更换新鲜培养基,去除药物影响,每孔加入10 μL CCK-8溶液,将培养板置于培养箱内孵育2 h。用酶标仪(Bio-Rad公司,美国)测定450 nm处的吸光度(OD)值以计算细胞活力。

1.2.2 RNA提取及质量检验

按照Magen总RNA提取试剂盒提取细胞总RNA,将提取后的总RNA进行质检,使用分光光度计(Eppendorf公司,德国)测定总RNA在260和280 nm处的OD值以确定是否符合后续试验要求,并通过琼脂糖凝胶电泳试验确认RNA的完整性。然后使用QubitTM RNA检测试剂盒(Life Technologies,Q10210,上海迈跟生物科技有限公司)对RNA进行Qubit 3.0定量分析。利用RNA 6000 Nano Assay Kit通过Agilent 5300系统对RNA完整值(RIN)及RNA质量峰图进行分析。

1.2.3 文库构建及检测

样品质控达到要求后,进行cDNA文库的构建与检测。使用Oligo-dT磁珠分离Poly(A)富集GMECs中的mRNA,然后添加fragmentation buffer,将mRNA打断成小片段。使用随机6 bp引物为模板反转录合成cDNA第1链,注入核糖核酸酶H(RNase H)及DNA聚合酶Ⅰ合成第2条cDNA链,使用QIAquick PCR提取试剂盒,对生成的cDNA片段进行纯化,继而加入EB缓冲液洗涤cDNA片段,对末端进行修复、加碱基A并连接测序接头。通过琼脂糖凝胶电泳在凝胶中提取目的片段,通过PCR纯化和富集cDNA片段以构建最终的cDNA文库。构建的cDNA文库名称为:CG(对照组)、EG(试验组)。cDNA文库在Illumina测序平台(IlluminaHiSeqTM 2000)上使用广州基迪奥生物科技有限公司的双末端技术进行测序。

1.3 RNA-Seq数据分析

1.3.1 测序数据质控

使用Fast QC软件对raw reads进行质量评估,并使用Trimmomatic软件对raw reads进行clean筛选,去除一些带接头、低质量的reads,对clean reads再进行新一轮质控,得到clean reads的数据信息。

1.3.2 参考序列比对

利用Trimmomatic、HISAT2软件对获得的测序数据进行过滤,与山羊参考基因组(ARS1)进行比对,获得各个位置的比对效率及位置序列,利用StringTie分析软件将比对上的序列组装,并与山羊参考基因组注释信息比较,确定序列中已知基因和未知基因来源。

1.3.3 基因表达水平分析

基因表达水平分析能够比较样品间基因表达的相关性,并筛选出差异表达基因(differentially expressed genes,DEGs)。通常用每千碱基每百万读取(reads per kilobase per million reads,RPKM)值作为基因表达水平的衡量指标,计算得到的基因表达水平可直接用于比较不同样品间的DEGs。利用比对到参考基因组和参考基因的unique reads统计基因表达水平,然后对表达的基因进行注释。

1.3.4 DEGs筛选

DEGs指样品间或同一样品经不同处理后,上调和下调表达基因的汇总。通常从差异倍数(fold change,FC)及显著水平两方面对DEGs进行评定,再对DEGs进行筛选,本研究以|log10FC|>1且P<0.05作为标准进行筛选并分析。

1.3.5 DEGs的基因本体论(gene ontology,GO)富集分析

GO数据库作为一个综合数据库,能够将转录本功能进行分类汇总。GO富集情况主要从3个方面确定,分别是生物学过程(biological process,BP)、细胞组分(cellular component,CC)和分子功能(molecular function,MF)。对DEGs进行注释并作GO富集分析图,有助于更好理解DEGs的分布情况及生物学功能。通过GO富集分析可以找出富集DEGs的GO分类条目,寻找不同样品的DEGs可能与哪些功能的改变相关。

1.3.6 DEGs的京都基因和基因组百科全书(Kyoto encyclopedia of genes and gnomes,KEGG)富集分析

不同基因能够在生物体中协同作用,参与到生物体代谢、信息传递和细胞过程等一系列信号通路中,KEGG数据库能够系统的对基因功能进行分析,并能够确定DEGs在生物体或细胞中参与的信号转导通路。为了了解基因的生物学功能、代谢途径等提供有利信息,KEGG富集分析可以通过超几何检验识别DEGs中显著富集的代谢途径或者信号传导通路。

1.4 实时荧光定量PCR(qRT-PCR)验证

为验证RNA-Seq结果,本研究随机选取10个DEGs利用qRT-PCR技术测定其在GMECs中的相对表达量,并进行计算及差异性分析。

1.5 数据统计分析

采用Excel 2019对试验数据进行初步整理和统计,并采用SPSS 23.0软件对各组数据进行单因素方差分析(one-way ANOVA),P<0.05表示差异显著。

2 结果与分析

2.1 DHA对GMECs细胞活力的影响

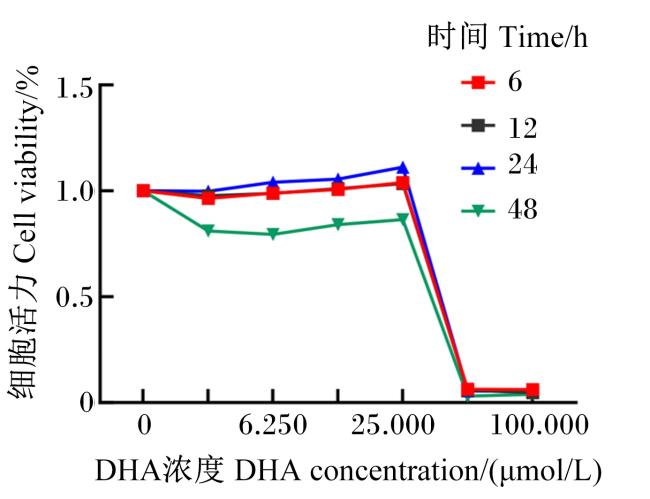
图2可知,与空白对照组相比,低浓度DHA(≤25.000 μmol/L)对各时间点GMECs细胞活力无明显抑制作用;当DHA浓度高于50.000 μmol/L时,GMECs细胞活力出现明显下降。在不同时间点,48 h时各浓度DHA处理GMECs细胞活力低于其他时间点,24 h时各浓度DHA处理GMECs细胞活力高于其他时间点。因此,选择处理时间为24 h、DHA浓度为25.000 μmol/L用于后续试验。
图2 DHA对GMECs细胞活力的影响

Fig.2 Effects of DHA on cell viability of GMECs

2.2 RNA-Seq结果分析

2.2.1 RNA质量分析

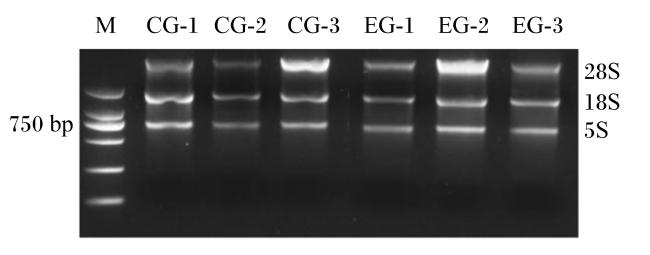
本试验提取到的测量样本的总RNA含量为19 835~47 195 ng,浓度为396.7~843.9 ng/μL,OD值为2.01~2.09,RIN均在7以上,符合试验质检要求。对RNA进行琼脂糖凝胶电泳后,可以清晰地看到28S、18S和5S电泳条带(图3),表明RNA整体质量较高,可进行下一步试验。
图3 RNA琼脂糖凝胶电泳图

M表示RNA标记,CG-1、CG-2和CG-3表示对照组(无DHA处理)样本,EG-1、EG-2和EG-3表示试验组(25.000 μmol/L DHA处理)样本。

Fig.3 RNA agarose gel electrophoresis diagram

M represented RNA marker, CG-1, CG-2 and CG-3 represented the samples in control group (without DHA treatment), and EG-1, EG-2 and EG-3 represented the samples in experimental group (25.000 μmol/L DHA treatment).

2.2.2 测序质量分析

通过对raw reads进行测序质控,得到6个样本的clean reads的平均数量为48 085 598条,其碱基质量值≥20的碱基所占百分比(Q20)在99%以上,碱基质量值≥30的碱基所占百分比(Q30)在96%以上,鸟嘌呤和胞嘧啶(GC)占比为53%左右,均处于测序要求正常范围,能够达到后续分析要求。

2.2.3 序列比对分析

以山羊参考基因组作为参考,对测序数据进行比对分析发现,各个组的比对效率为98.18%~98.43%,表明所选基因组匹配度较高,满足进一步分析需要。序列比对分析结果表明,能够比对到多个位置的序列约占2.78%,有唯一比对位置的序列约占97.22%,未比对到参考序列上的序列数目平均值为1.77%,单个试验样品CG-1与EG-1具体比对到参考基因组的数据情况见表1
表1 序列比对到参考基因组的数据情况

Table 1 Sequence alignment to reference genome data

项目
Items
对照组
Control group (CG-1)
试验组
Experimental group (EG-1)
Total reads 46 665 500 45 149 126
Total mapped 45 814 417(98.18%) 44 286 525(98.09%)
Non unique 1 303 283(2.84%) 1 210 247(2.73%)
Unique 44 511 134(97.16%) 43 076 278(97.27%)
Un mapped reads 851 083(1.82%) 862 601(1.91%)
Read1 22 219 729(49.92%) 21 505 864(49.93%)
Read2 22 291 405(50.08%) 21 570 414(50.07%)
Reads map plus 22 255 781(50.00%) 21 538 531(50.00%)
Reads map minus 22 255 353(50.00%) 21 537 747(50.00%)
Non splice reads 18 942 014(42.56%) 18 913 180(43.91%)
Splice reads 25 569 120(57.44%) 24 163 098(56.09%)

Total reads:用户标识(UID)去重后的reads总数 total number of reads after user identification (UID) deduplication;Total mapped:比对到参考基因组上的序列总数 total number of sequences aligned to the reference genome;Non unique:在参考序列上有多个比对位置的序列数目 number of sequences with multiple alignment positions on the reference sequence;Unique:在参考序列上有唯一比对位置的序列数目 number of sequences with unique alignment position on the reference sequence;Un mapped reads:未比对到参考序列上的序列数目 number of sequences not aligned to the reference sequence;Read1和Read2:序列两端分别定位到参考基因组上的序列数目 number of sequences located on each end of the sequence to the reference genome;Reads map plus:比对到参考基因组上的正链序列数目 number of plus-strand sequences aligned to the reference genome;Reads map minus:比对到参考基因组上的负链序列数目 number of minus-strand sequences aligned to the reference genome;Non splice reads:整段比对到外显子的序列数目 number of sequences whole aligned to the exon;Splice reads:分段比对到2个外显子上的序列数目 number of sequences piecewise aligned to two exons。括号内的数值表示所占比例 numbers in parentheses indicated the proportion。

2.3 基因表达水平分析

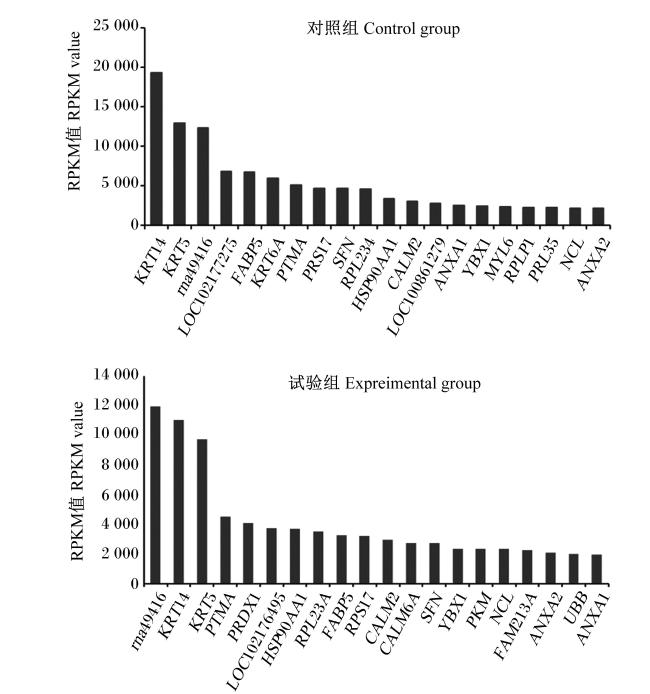
经测序,本试验共得到转录本20 652条,其中对照组样品分别有17 772、17 045和16 890条有效转录本,试验组样品分别有17 861、17 296和17 826条有效转录本。单个试验样品CG-1和EG-1的基因表达水平分析见表2。为评估各组样品基因表达水平的差异,根据RPKM值的大小,将基因表达水平分为5个等级:极低表达基因(RPKM<0.01)、低表达基因(0.01≤RPKM<10)、中表达基因(10≤RPKM<200)、高表达基因(200≤RPKM<500)和超高表达基因(500≤RPKM)。结果显示,在各组样品中,绝大多数基因属于低表达基因,高表达和超高表达基因分别约占1.34%和0.72%,根据PPKM值的大小列出对照组和试验组表达水平前20的基因,如图4所示。
表2 基因表达水平分析

Table 2 Analysis of gene expression level

RPKM间隔
RPKM interval
对照组
Control group (CG-1)
试验组
Experimental group (EG-1)
有效转录本Valid transcripts 17 772 17 861
极低表达基因Very low expression gene (RPKM<0.01) 231(1.30%) 204(1.14%)
低表达基因Low expression gene (0.01≤RPKM<10) 12 361(69.55%) 12 348(69.13%)
中表达基因Medium expression gene (10≤RPKM<200) 4 789(26.95%) 4 935(27.63%)
高表达基因High expression gene (200≤RPKM<500) 251(1.41%) 253(1.42%)
超高表达基因Ultrahigh expression gene (500≤RPKM) 140(0.79%) 121(0.68%)

括号内的数值表示所占比例。

Numbers in parentheses indicated the proportion.

图4 基于RPKM值表达水平前20的基因

KRT14:角蛋白14 keratin 14;KRT5:角蛋白5 keratin 5;FABP5:脂肪酸结合蛋白5 fatty acid binding protein 5;KRT6A:角蛋白6A keratin 6A;PTMA:前胸腺素alpha prothymosin alpha;PRS17:核糖体蛋白S17 ribosomal protein S17;SFN:萝卜硫素 sulforaphane;RPL23A:核糖体蛋白L23A ribosomal protein L23A;HSP90AA1:热休克蛋白90α家族A类成员1 heat shock protein 90 alpha family, class A, member 1; CALM2:钙调蛋白2 calmodulin 2;ANXA1:膜联蛋白A1 annexin A1;YBX1:Y框结合蛋白1 Y-box binding protein 1;MYL6:肌球蛋白轻多肽6 myosin light polypeptide 6;RPLP1:核糖体蛋白侧柄亚单位P1 ribosomal protein lateral stalk subunit P1;PRL35:核糖体蛋白L35 ribosomal protein L35;NCL:核仁蛋白 nucleolin;ANXA2:膜联蛋白A2 annexin A2;PRDX1:过氧化物氧还蛋白1 peroxiredoxin 1;PKM:丙酮酸激酶肌肉 pyruvate kinase, muscle;FAM213A:序列相似性家族213成员A family with sequence similarity 132, member A;UBB:泛素B ubiquitin B。

Fig.4 Top 20 genes in expression levels based on RPKM value

2.4 DEGs分析

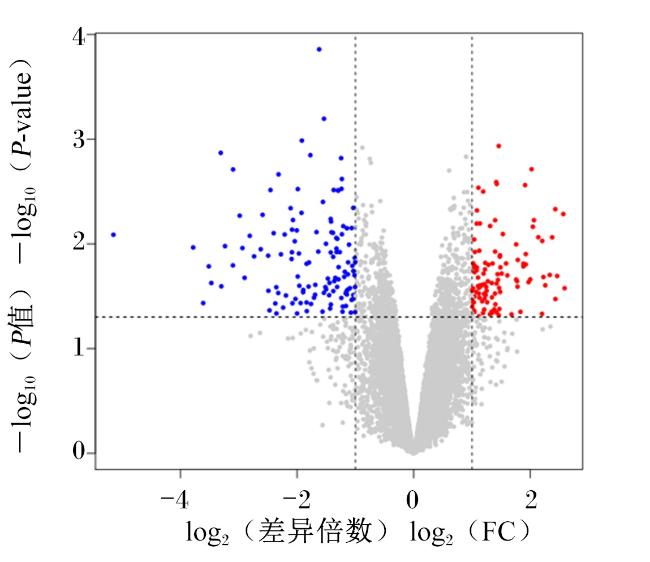
本试验从FC和显著水平方面对DEGs进行筛选,以|log10FC|>1且P<0.05作为筛选DEGs标准,共筛选出236个显著DEGs,其中108个基因表达上调,另128个基因表达下调。DEGs火山图见图5
图5 DEGs火山图

Fig.5 Volcano plot of DEGs

2.5 GO和KEGG富集分析

2.5.1 GO功能注释

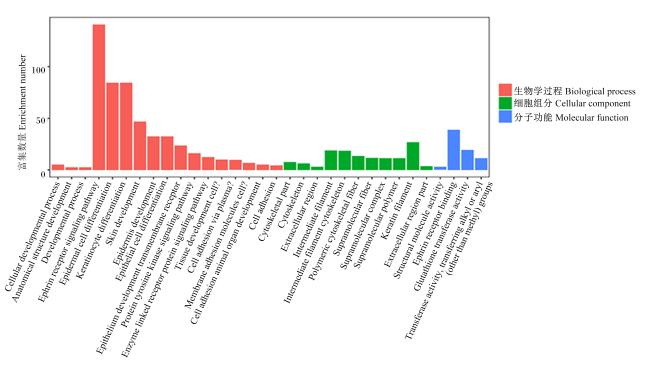
根据GO功能富集的筛选标准(P<0.05),下调DEGs共富集到175个注释节点中,结果如图6所示,其中37个(21.14%)DEGs参与到生物学过程,119个(68.00%)DEGs参与到细胞组分,19个(10.86%)DEGs参与到分子功能。在生物学过程类别中,较显著的GO注释是肝配蛋白受体信号通路(ephrin receptor signaling pathway)(GO:0048013)和表皮细胞分化(epidermal cell differentiation)(GO:0009913);在细胞组分类别中,较显著的GO注释是角蛋白丝(keratin filament)(GO:0045095)、中间丝状体(intermediate filament)(GO:0005882)和中间丝状体细胞骨架(intermediate filament cytoskeleton)(GO:0045111);在分子功能类别中,较显著的GO注释是肝配蛋白受体结合(ephrin receptor binding)(GO:0046875)、谷胱甘肽转移酶活性(glutathione transferase activity)(GO:0004364)和转移酶活性、转移烷基或芳香基(甲基除外)基团[transferase activity, transferring alkyl or aryl (other than methyl) groups](GO:0016765)。
图6 下调DEGs GO功能注释

Cellular developmental process:细胞发育过程;Anatomical structure development:解剖结构发展;Developmental process:发育历程;Ephrin receptor signaling pathway:肝配蛋白受体信号通路;Epidermal cell differentiation:表皮细胞分化;Keratinocyte differentiation:角化细胞分化;Skin development:皮肤发育;Epidermis development:表皮发育;Epithelial cell differentiation:上皮细胞分化;Epithelium development transmembrane receptor:上皮细胞发育跨膜受体;Protein tyrosine kinase signaling pathway:蛋白酪氨酸激酶信号通路;Enzyme linked receptor protein signaling pathway:酶联受体蛋白信号通路;Tissue development cell?:组织发育细胞?;Cell adhesion via plasma?:细胞通过血浆黏附?;Membrane adhesion molecules cell?:膜黏附分子细胞?;Cell adhesion animal organ development:细胞黏附动物器官发育;Cell adhesion:细胞黏附;Cytoskeletal part:细胞骨架部分;Cytoskeleton:细胞骨架;Extracellular region:胞外区;Intermediate filament:中间丝状体;Intermediate filament cytoskeleton:中间丝状体细胞骨架;Polymeric cytoskeletal fiber:聚合细胞骨架纤维;Supramolecular fiber:超分子纤维;Supramolecular complex:超分子复合体;Supramolecular polymer:超分子聚合物;Keratin filament:角蛋白丝;Extracellular region part:胞外区部分;Structural molecule activity:结构分子活性;Ephrin receptor binding:肝配蛋白受体结合;Glutathione transferase activity:谷胱甘肽转移酶活性;Transferase activity, transferring alkyl or aryl (other than methyl) groups:转移酶活性、转移烷基或芳香基(甲基除外)基团。

Fig.6 Go function annotation of down-regulated DEGs

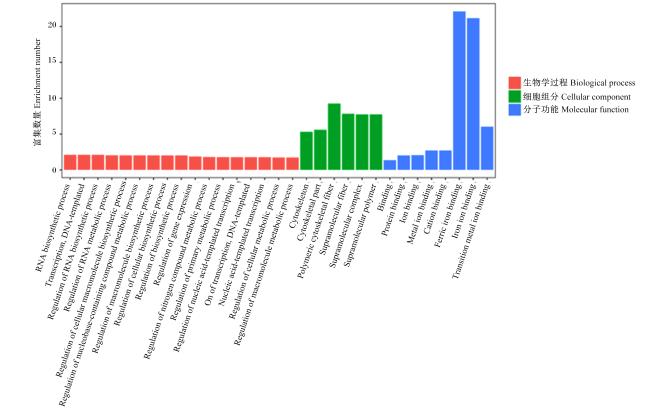
上调DEGs共富集到217个注释节点中,结果如图7所示,其中102个(47.01%)DEGs参与到生物学过程,39个(17.97%)DEGs参与到细胞组分,76个(35.02%)DEGs参与到分子功能。在生物学过程类别中,较显著的GO注释是转录,DNA模板(transcription,DNA-templated)(GO:0006355)、核酸模板转录调控(regulation of nucleic acid-templated transcription)(GO:1903506)和RNA生物合成过程调控(regulation of RNA biosynthetic process)(GO:2001141);在细胞组分类别中,较显著的GO注释是聚合细胞骨架纤维(polymeric cytoskeletal fiber)(GO:0099513)、超分子纤维(supramolecular fiber)(GO:0099512)和超分子聚合物(supramolecular polymer)(GO:0099081);在分子功能类别中,较显著的GO注释是三价铁离子结合(ferric iron binding)(GO:0008199)、铁离子结合(iron ion binding)(GO:0005506)和过渡金属离子结合(transition metal ion binding)(GO:0046914)。
图7 上调DEGs GO功能注释

RNA biosynthetic process:RNA生物合成过程;Transcription, DNA-templated:转录,DNA模板;Regulation of RNA biosynthetic process:RNA生物合成过程调控;Regulation of RNA metabolic process:RNA代谢过程调控;Regulation of cellular macromolecule biosynthetic process:细胞大分子生物合成过程调控;Regulation of nucleobase-containing compound metabolic process:含核碱基化合物代谢过程调控;Regulation of macromolecule biosynthetic process:大分子生物合成过程调控;Regulation of cellular biosynthetic process:细胞生物合成过程调控;Regulation of biosynthetic process:生物合成过程调控;Regulation of gene expression:基因表达调控;Regulation of nitrogen compound metabolic process:氮化合物代谢过程调控;Regulation of primary metabolic process:初级代谢过程调控;Regulation of nucleic acid-templated transcription:核酸模板转录调控;On of transcription, DNA-templated:关于转录,DNA模板;Nucleic acid-templated transcription:核酸模板转录;Regulation of cellular metabolic process:细胞代谢过程调控;Regulation of macromolecule metabolic process:大分子代谢过程调控;Cytoskeleton:细胞骨架;Cytoskeletal part:细胞骨架部分;Polymeric cytoskeletal fiber:聚合细胞骨架纤维;Supramolecular fiber:超分子纤维;Supramolecular complex:超分子复合体;Supramolecular polymer:超分子聚合物;Binding:结合;Protein binding:蛋白结合;Ion binding:离子结合;Metal ion binding:金属离子结合;Cation binding:阳离子结合;Ferric iron binding:三价铁离子结合;Iron ion binding:铁离子结合;Transition metal ion binding:过渡金属离子结合。

Fig.7 GO function annotation of up-regulated DEGs

2.5.2 DEGs的GO富集分析

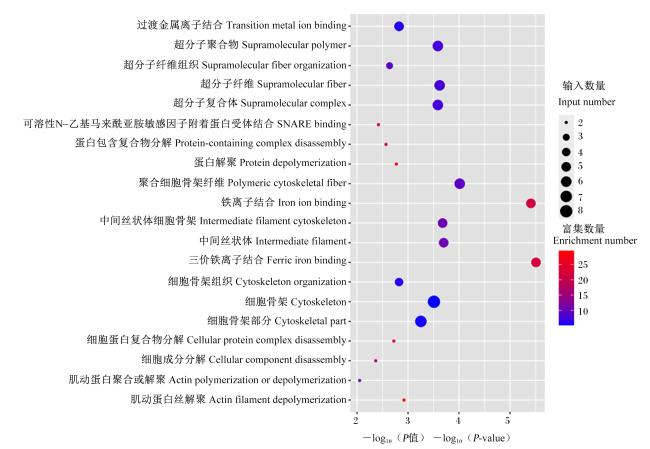
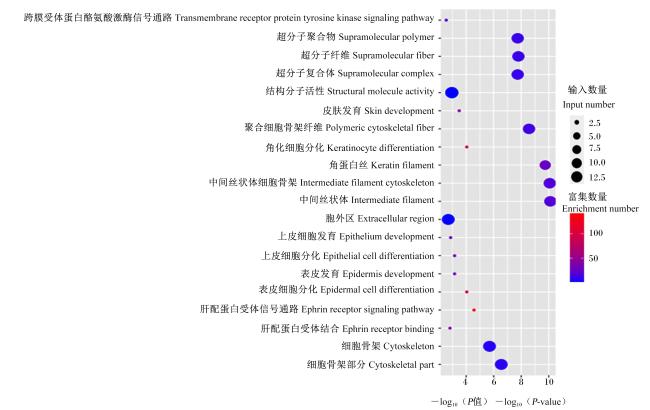
通过对GO数据进行分析,选取上调和下调的前20差异GO富集通路分别做散点图(图8图9)可知,在上调通路中,显著富集的通路为三价铁离子结合(ferric iron binding)、铁离子结合(iron ion binding)、聚合细胞骨架纤维(polymeric cytoskeletal fiber)、中间丝状体细胞骨架(intermediate filament cytoskeleton)和中间丝状体(intermediate filament);在下调通路中,显著富集的通路为肝配蛋白受体信号通路(ephrin receptor signaling pathway)、角蛋白丝(keratin filament)和表皮细胞分化(epidermal cell differentiation)等。
图8 上调前20差异GO富集通路散点图

Fig.8 Scatter plots of top 20 differentially up-regulated GO enrichment pathways

图9 下调前20差异GO富集通路散点图

Fig.9 Scatter plots of top 20 differentially down-regulated GO enrichment pathways

2.5.3 DEGs的KEGG富集分析

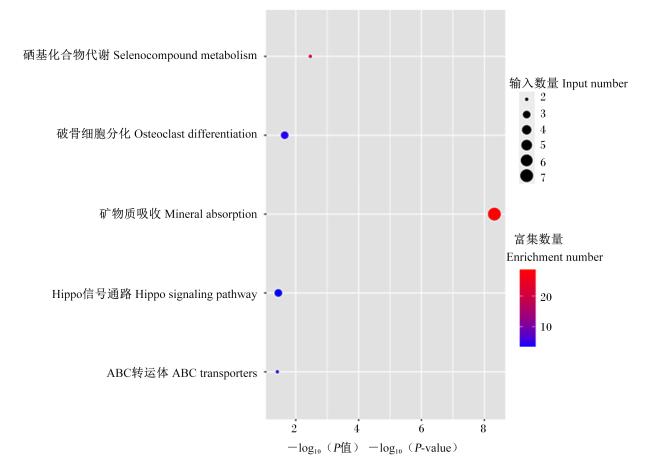
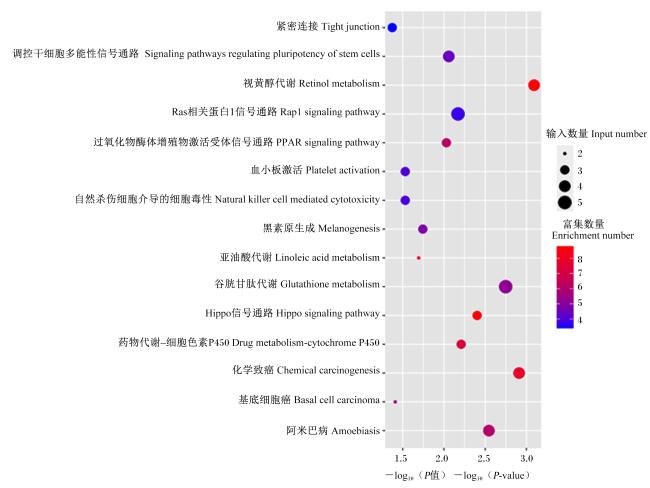
P<0.05作为判定标准,通过对KEGG数据分析,共富集到19个通路和68个DEGs,上调和下调DEGs KEGG显著富集通路见表3,KEGG显著富集通路散点图见图10图11。其中,下调基因富集较显著的通路是视黄醇代谢(retinol metabolism)、过氧化物酶体增殖物激活受体信号通路(PPAR signaling pathway)、化学致癌(chemical carcinogenesis)、Hippo信号通路(Hippo signaling pathway)、谷胱甘肽代谢(glutathione metabolism)、黑素原生成(melanogenesis)及亚油酸代谢(linoleic acid metabolism);上调基因富集较显著的通路是矿物质吸收(mineral absorption)和硒基化合物代谢(selenocompound metabolism)。
表3 DEGs KEGG显著富集通路

Table 5 KEGG significant enrichment pathways of DEGs

KEGG编号
KEGG No.
通路
Pathways
显著数
Significant
number
本底数
Background
number
P
P-value
结果
Result
chx00830 视黄醇代谢Retinol metabolism 4 72 0.000 807 下调
chx05204 化学致癌Chemical carcinogenesis 4 81 0.001 226 下调
chx04390 Hippo信号通路Hippo signaling pathway 5 153 0.001 784 下调
chx05146 阿米巴病Amoebiasis 4 103 0.002 850 下调
chx00480 谷胱甘肽代谢Glutathione metabolism 3 55 0.003 957 下调
chx00982 药物代谢-细胞色素P450
Drug metabolism-cytochrome P450
3 65 0.006 178 下调
chx04015 Ras相关蛋白1信号通路Rap1 signaling pathway 5 211 0.006 752 下调
chx04550 调控干细胞多能性信号通路
Signaling pathways regulating pluripotency of stem cells
4 143 0.008 729 下调
chx03320 过氧化物酶体增殖物激活受体信号通路
PPAR signaling pathway
3 76 0.009 334 下调
chx04916 黑素原生成Melanogenesis 3 98 0.018 043 下调
chx00591 亚油酸代谢Linoleic acid metabolism 2 38 0.020 211 下调
chx04650 自然杀伤细胞介导的细胞毒性
Natural killer cell mediated cytotoxicity
3 119 0.029 450 下调
chx04611 血小板激活Platelet activation 3 119 0.029 450 下调
chx05217 基底细胞癌Basal cell carcinoma 2 55 0.038 951 下调
chx04530 紧密连接Tight junction 3 138 0.042 374 下调
chx04978 矿物质吸收Mineral absorption 7 46 4.80×10⁻⁹ 上调
chx00450 硒基化合物代谢Selenocompound metabolism 2 17 0.003 446 上调
chx04380 破骨细胞分化Osteoclast differentiation 3 127 0.022 562 上调
chx04390 Hippo信号通路Hippo signaling pathway 3 153 0.035 938 上调
图10 显著上调KEGG富集通路散点图

Fig.10 Scatter plots of significantly up-regulated KEGG enrichment pathways

图11 显著下调KEGG富集通路散点图

Fig.11 Scatter plots of significantly down-regulated KEGG enrichment pathways

2.5.4 qRT-PCR验证结果

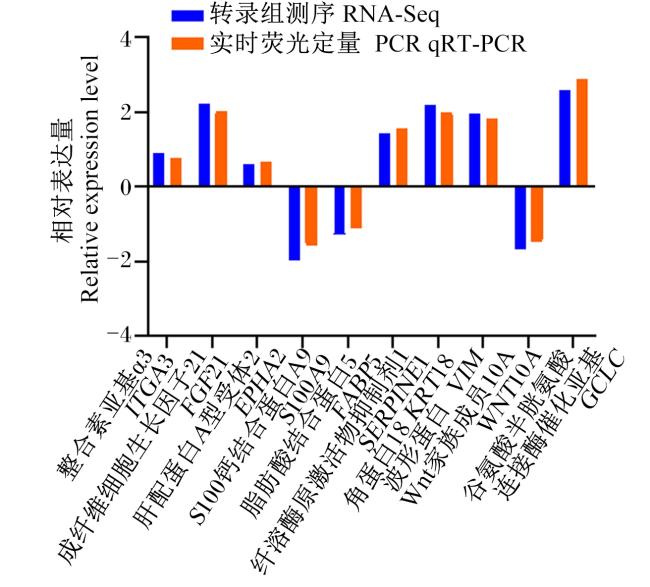
对随机挑选的10个DEGs[整合素亚基α3(ITGA3)、成纤维细胞生长因子21(FGF21)、肝配蛋白A型受体2(EPHA2)、S100钙结合蛋白A9(S100A9)、脂肪酸结合蛋白5(FABP5)、纤溶酶原激活物抑制剂1(SERPINE1)、角蛋白18(KRT18)、波形蛋白(VIM)、Wnt家族成员10A(WNT10A)和谷氨酸半胱氨酸连接酶催化亚基(GCLC)]进行qRT-PCR验证,结果如图12所示,表明选取的DEGs与RNA-Seq上调、下调结果具有一致性,证明RNA-Seq结果具有真实性和准确性。
图12 DEGs的qRT-PCR验证结果

Fig.12 qRT-PCR validation results of DEGs

3 讨论

3.1 DHA对GMECs细胞活力的影响

GMECs的细胞活力能够影响乳腺组织的泌乳能力[10]。本试验参考了DHA在牛乳腺上皮细胞系中DHA的适宜浓度,He等[11]发现,不同浓度的DHA(25、50和100 μmol/L)对原代牛乳腺上皮细胞活力均无显著差异,但能通过部分依赖于过氧化物酶体增殖物激活受体(PPAR)γ激活的机制抑制核转录因子-κB(NF-κB)激活,从而减弱细胞的炎症反应。Maillard等[12]在牛卵泡颗粒细胞中添加不同浓度DHA(1、10、20和50 μomol/L)发现,DHA能对该细胞起到一定的刺激作用,且在10和50 μmol/L的DHA浓度条件下,能够促进细胞的增殖。本试验结果发现,浓度和作用时间在DHA对GMECs增殖的影响中具有一定效应,在较低浓度(≤25.000 μmol/L)条件下,DHA对GMECs细胞活力无较大影响,而高浓度的DHA能够显著抑制GMECs增殖,且24 h时各浓度DHA处理GMECs细胞活力高于其他时间点。因此,选择处理时间为24 h、DHA浓度为25.000 μmol/L用于后续试验。

3.2 RNA-Seq数据分析

转录组由Velculescu等[13]首次提出,通过对不同转录组数据的分析,可以获得物种或细胞等生物学研究过程或疾病发生的相关机制。本试验通过对获得的序列进行比对后发现,98.18%~98.43%的clean reads能够比对到山羊参考基因组上,且唯一比对率的样本序列为96.94%~97.39%;此外,在对基因表达水平的分析中发现,大部分基因为低表达基因(0.01≤RPKM<10),超高表达基因(500≤RPKM)较少,仅占0.72%左右,基因表达水平的高低可能与DHA的添加有关。

3.3 DEGs GO富集分析

通过对GO富集分析发现,DEGs在细胞骨架、角蛋白家族、肝配蛋白信号传导通路及铁离子结合中发挥主要功能。细胞骨架是一个复杂的、动态的生物聚合物网络,试验表明它在细胞形态、黏附功能、细胞运动及信号转导方面能发挥关键作用,其以特定的方式参与Rho家族鸟苷三磷酸酶(Rho GTPases)、哺乳动物雷帕霉素靶蛋白(mTOR)和Hippo等信号通路的信号转导,对细胞起到一定的作用[14-15]。其中,mTOR通路参与脂类代谢,研究发现,mTOR通路对脂质代谢中关键酶基因有关联性,能够对牛乳腺上皮细胞中TG和脂肪酸起到正向调控的作用[16]。Rho GTPases在细胞迁移、伤口愈合、细胞黏附、膜运输和细胞分裂过程中发挥作用[17]。Hippo通路能够调节多种生物过程,在感知内在和外在信号以及在细胞和器官水平的细胞增殖、分化和迁移方面发挥着关键作用,并与细胞骨架也有着密不可分的关系;此外,Hippo通路还与肿瘤、癌症相关,Hippo通路的失调会导致异常细胞生长和肿瘤形成,并导致肺癌、结肠直肠癌、卵巢癌和肝癌等癌症[18-20]。肝配蛋白信号传导通路在神经、血管及细胞黏附中发挥作用,肝配蛋白可通过双向信号参与细胞骨架形成、细胞黏附、细胞间连接以及细胞形态和运动,临床样本中mRNA和蛋白质的表达分析揭示了肝配蛋白通路参与肿瘤发生、阿尔茨海默病和动脉粥样硬化,在心脑血管疾病中具有重要意义,被认为是一个有希望的治疗靶点[21]。研究发现,在多种肿瘤细胞中,肝配蛋白信号转导能通过激活肉瘤病毒基因(Src)、信号转导和转录活化因子3(STAT3)、基质金属蛋白酶8(MMP8)和Ras相关的C3肉毒素底物1(RAC1)等促进细胞的上皮间质转化和侵袭;肝配蛋白还能与细胞膜上的非Eph受体结合从而参与肿瘤血管的生成和伤口修复[22]。研究发现,轻肽铁蛋白(FTL)基因能够被NOP2/Sun RNA甲基转移酶家族成员5(NSUN5)进行甲基化修饰,起到抗骨髓间充质干细胞铁死亡的作用,从而影响细胞的增殖和凋亡[23]。在本试验中,通过对DEGs的GO富集分析可以确定,DHA能够通过各种生物学功能影响GMECs的增殖、凋亡,对细胞骨架具有重要意义,并在细胞炎症及肿瘤相关方向发挥一定的作用。

3.4 DEGs KEGG富集分析

在KEGG富集通路中发现,DEGs主要富集在细胞代谢、免疫及各种信号通路中;其中,在视黄醇代谢、谷胱甘肽代谢和亚油酸代谢显著富集。研究发现,视黄醇代谢途径中视网膜脱氢酶12(RDH12)基因的显著表达能够对癌细胞的增殖、侵袭和迁移起到抑制作用,成为癌症治疗的新靶点[24]。本研究中,DHA能够上调差异基因RDH12,说明DHA对抗癌能够发挥作用。谷胱甘肽具有抗氧化特性,并能够参与细胞信号传导,对细胞增殖、凋亡发挥作用。在谷胱甘肽代谢体系中,谷胱甘肽过氧化物酶(GSH-Px)能够特异性催化谷胱甘肽和过氧化氢(H2O2)反应,生成的氧化性谷胱甘肽(GSSG)和水能够减少脂质过氧化物的形成,从而保护细胞膜结构和功能,维持机体平衡[25]。亚油酸作为一种不饱和脂肪酸,具有一系列的生物学功能,包括抑制肿瘤发生、降低心血管疾病的发生及调节免疫反应。亚油酸代谢是脂类代谢通路的一种,亚油酸能够促进脂肪酸代谢通路关键酶的表达,减轻炎症和器官损伤[26-27]。在免疫功能方面,KEGG通路在杀菌、癌症和炎症等方面显著表达。其中,黑色素生成通路表达最为显著,黑色素表达量增多会引发恶性肿瘤,黑色素形成与Wnt、环磷酸腺苷(cAMP)和丝裂原活化蛋白激酶(MAPK)等通路息息相关,能够调控黑色素的生成及相关转录因子的表达[28]。PPAR信号通路是配体激活的转录因子,属于核受体超家族,以α、β/δ和γ 3种同种型存在[29]。PPARγ是一种配体依赖性转录因子,属于激素核受体超家族,它与其他2种同种型(即PPARα和PPARβ/δ)一起调节涉及脂质和碳水化合物代谢、胰岛素敏感性、神经保护和炎症的几个基因的表达[30]。研究表明,DHA抑制了NF-κB信号通路中NF-κB和核转录因子-κB抑制因子(IκBα)的磷酸化,激活了PPARγ,从而减弱了奶牛乳腺上皮细胞中脂多糖(LPS)刺激的炎症反应[1]。DHA已被证明可与PPARγ结合,并且有人提出其抗炎作用部分是通过PPARγ激活来发挥的[31]。在本试验PPAR信号通路中,FABP5和WNT10A显著下调。FABP5属于脂肪酸结合蛋白家族,能够参与脂肪酸的摄取、结合、转运及代谢[32]。研究表明,FABP5作为一种促癌基因在多种肿瘤中表达,并能够作为治疗乳腺癌的有利靶点作用于多类癌症中,在乳腺癌细胞中研究发现抑制FABP5能够有效降低乳腺癌细胞活性和肿瘤发生[33-34]WNT10A是细胞癌变相关基因,能够同时在PPAR通路和Wnt通路中表达,通过调节纤维化因子肿瘤发生中起关键作用,WNT10A的缺乏通过减少基质形成和促进坏死显著抑制肿瘤的生长[35-36]
综上所述,通过GO和KEGG富集分析,对DEGs参与的生物学过程、细胞组分、分子功能及显著信号通路进行分析,其中亚油酸代谢及PPAR信号通路对脂质代谢发挥一定的效果,影响乳腺的发育和泌乳,但具有的探究机制仍需进行更深入研究。

4 结论

① 添加25.000 μmol/L DHA对GMECs增殖出现明显促进,但当DHA浓度大于25.000 μmol/L时,GMECs增殖出现明显抑制。
② RNA-Seq结果表明,DHA在GMECs细胞骨架、免疫及代谢方面具有显著性影响,并通过对FABP5、WNT10A等相关基因表达的调控,调节亚油酸代谢及PPAR信号通路。
[1]
MARVENTANO S, KOLACZ P, CASTELLANO S, et al. A review of recent evidence in human studies of n-3 and n-6 PUFA intake on cardiovascular disease,cancer,and depressive disorders:does the ratio really matter?[J]. International Journal of Food Sciences and Nutrition, 2015, 66(6):611-622.

DOI

[2]
COLOMBO S M, RODGERS T F M, DIAMOND M L, et al. Projected declines in global DHA availability for human consumption as a result of global warming[J]. Ambio, 2020, 49(4):865-880.

DOI PMID

[3]
TOCHER D R, BETANCOR M B, SPRAGUE M, et al. Omega-3 long-chain polyunsaturated fatty acids,EPA and DHA:bridging the gap between supply and demand[J]. Nutrients, 2019, 11(1):89.

DOI

[4]
骆东梅. 山羊乳腺上皮长链脂肪酸跨膜转运特征研究[D]. 硕士学位论文. 重庆: 西南大学, 2020.

LUO D M. The study of characteristics of trans-membrane transport of long-chain fatty acids in goat mammary epithelial cells[D]. Master’s Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[5]
郭丹. miR-21-5p对奶山羊乳腺上皮细胞凋亡及泌乳调控作用的研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2020.

GUO D. The regulatory effect of miR-21-5p on the apoptosis and lactation of dairy goat mammary epithelial cells[D]. Master’s Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[6]
潘坛. 过表达与干扰TRIB3基因对奶山羊乳腺上皮细胞脂质代谢的影响[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2020.

PAN T. Overexpression and RNA interference of TRIB3 gene on lipid metabolism in dairy goat mammary epithelial cells[D]. Master’s Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[7]
KAN M Y, SHUMYATCHER M, HIMES B E. Using omics approaches to understand pulmonary diseases[J]. Respiratory Research, 2017, 18(1):149.

DOI PMID

[8]
WANG Z, GERSTEIN M, SNYDER M. RNA-Seq:a revolutionary tool for transcriptomics[J]. Nature Reviews Genetics, 2009, 10(1):57-63.

DOI

[9]
SI J Z, TANG X, XU L, et al. High throughput sequencing of whole transcriptome and construct of ceRNA regulatory network in RD cells infected with enterovirus D68[J]. Virology Journal, 2021, 18(1):216.

DOI PMID

[10]
李慧. 乳品行业的体验营销[J]. 中国乳业, 2013(3):68-70.

LI H. Experience marketing in the dairy industry[J]. China Dairy, 2013(3):68-70. (in Chinese)

[11]
HE X X, LIU W J, SHI M Y, et al. Docosahexaenoic acid attenuates LPS-stimulated inflammatory response by regulating the PPARγ/NF-κB pathways in primary bovine mammary epithelial cells[J]. Research in Veterinary Science, 2017, 112:7-12.

DOI PMID

[12]
MAILLARD V, DESMARCHAIS A, DURCIN M, et al. Docosahexaenoic acid (DHA) effects on proliferation and steroidogenesis of bovine granulosa cells[J]. Reproductive Biology and Endocrinology, 2018, 16(1):40.

DOI PMID

[13]
VELCULESCU V E, ZHANG L, ZHOU W, et al. Characterization of the yeast transcriptome[J]. Cell, 1997, 88(2):243-251.

PMID

[14]
LINTHICUM W, THANH M T H, VITOLO M I, et al. Effects of PTEN loss and activated KRAS overexpression on mechanical properties of breast epithelial cells[J]. International Journal of Molecular Sciences, 2018, 19(6):1613.

DOI

[15]
刘亚利, 陈雪松. 细胞骨架在乳腺癌中的研究进展[J]. 中华乳腺病杂志(电子版), 2021, 15(4):235-237.

LIU Y L, CHEN X S. Research progress of cytoskeleton in breast cancer[J]. Chinese Journal of Breast Disease (Electronic Edition), 2021, 15(4):235-237. (in Chinese)

[16]
郭志新. mTOR信号通路在牛乳腺上皮细胞甘油三脂和脂肪酸合成中的作用[D]. 硕士学位论文. 呼和浩特: 内蒙古大学, 2016.

GUO Z X. Regulation of triacylglycerol and fatty acids synthesis by mTOR signaling pathway in BMECs[D]. Master’s Thesis. Hohhot: Inner Mongolia University, 2016. (in Chinese)

[17]
HALL A. Rho family GTPases[J]. Biochemical Society Transactions, 2012, 40(6):1378-1382.

DOI PMID

[18]
HARVEY K F, ZHANG X M, THOMAS D M. The hippo pathway and human cancer[J]. Nature Reviews Cancer, 2013, 13(4):246-257.

DOI PMID

[19]
MA S H, MENG Z P, CHEN R, et al. The hippo pathway:biology and pathophysiology[J]. Annual Review of Biochemistry, 2019, 88:577-604.

DOI

[20]
MENG Z P, MOROISHI T, GUAN K L. Mechanisms of Hippo pathway regulation[J]. Genes & Development, 2016, 30(1):1-17.

DOI

[21]
IEGUCHI K, MARU Y. Eph/ephrin signaling in the tumor microenvironment[J]. Advances in Experimental Medicine and Biology, 2021, 1270:45-56.

DOI PMID

[22]
PASQUALE E B. Eph receptors and ephrins in cancer:bidirectional signalling and beyond[J]. Nature Reviews Cancer, 2010, 10(3):165-180.

DOI

[23]
刘洁. 丹酚酸B通过mir-582-3p-NSUN5-FTH1/FTL通路治疗急性肝衰竭表观机制研究[D]. 博士学位论文. 广州: 广州中医药大学, 2021.

LIU J. Study on the apparent mechanism of salvianolic acid B combined with stem cells in the treatment of acute liver failure[D]. Ph.D.Thesis. Guangzhou: Guangzhou University of Chinese Medicine, 2021. (in Chinese)

[24]
刘鹏飞. 视黄醇代谢相关基因LRAT/RDH12在宫颈鳞癌进展中的作用和机制研究[D]. 博士学位论文. 北京: 北京协和医学院, 2016.

LIU P F. The effect and mechanism of retinol metabolism related genes LRAT/RDH12 in the progress of squamous cervical cancer[D]. Ph.D. Thesis. Beijing: Peking Union Medical College, 2016. (in Chinese)

[25]
ISMAIL N A, OKASHA S H, DHAWAN A, et al. Antioxidant enzyme activities in hepatic tissue from children with chronic cholestatic liver disease[J]. Saudi Journal of Gastroenterology, 2010, 16(2):90-94.

DOI

[26]
LIU Y J, LI H, TIAN Y, et al. PCTR1 ameliorates lipopolysaccharide-induced acute inflammation and multiple organ damage via regulation of linoleic acid metabolism by promoting FADS1/FASDS2/ELOV2 expression and reducing PLA2 expression[J]. Laboratory Investigation, 2020, 100(7):904-915.

DOI

[27]
WHELAN J, FRITSCHE K. Linoleic acid[J]. Advances in Nutrition, 2013, 4(3):311-312.

DOI PMID

[28]
罗晓君, 蒋咏梅, 章文贤. 黑色素的生成机制、相关疾病及抑制策略概述[J]. 生物学教学, 2021, 46(2):5-7.

LUO X J, JIANG Y M, ZHANG W X. A brief introduction to melanin production,related diseases and inhibition strategies[J]. Biology Teaching, 2021, 46(2):5-7. (in Chinese)

[29]
BEYER A M, BAUMBACH G L, HALABI C M, et al. Interference with PPARγ signaling causes cerebral vascular dysfunction,hypertrophy,and remodeling[J]. Hypertension, 2008, 51(4):867-871.

DOI

[30]
BERNARDO A, MINGHETTI L. Regulation of glial cell functions by PPAR-γ natural and synthetic agonists[J]. PPAR Research, 2008, 2008:864140.

[31]
NIEMOLLER T D, BAZAN N G. Docosahexaenoic acid neurolipidomics[J]. Prostaglandins & Other Lipid Mediators, 2010, 91(3/4):85-89.

[32]
ISO T, MAEDA K, HANAOKA H, et al. Capillary endothelial fatty acid binding proteins 4 and 5 play a critical role in fatty acid uptake in heart and skeletal muscle[J]. Arteriosclerosis,Thrombosis,and Vascular Biology, 2013, 33(11):2549-2557.

DOI

[33]
潘龙. FABP5上调IL6/STAT3/VEGFA通路促进肝细胞肝癌肿瘤血管生成[D]. 博士学位论文. 重庆: 重庆医科大学, 2018.

PAN L. FABP5 promotes tumor angiogenesis and activates the IL6/STAT3/VEGFA pathway in hepatocelluar carcinoma[D]. Ph.D. Thesis. Chongqing: Chongqing Medical University, 2018. (in Chinese)

[34]
陈思竹. FABP5抑制剂SBFI-26抗乳腺癌作用及机制研究[D]. 硕士学位论文. 成都: 成都大学, 2020.

CHEN S Z. Anti-breast cancer effect and mechanism of SBFI-26,a inhibitor of FABP5[D]. Master’s Thesis. Chengdu: Chengdu University, 2020. (in Chinese)

[35]
KLAUS A, BIRCHMEIER W. Wnt signalling and its impact on development and cancer[J]. Nature Reviews Cancer, 2008, 8(5):387-398.

DOI PMID

[36]
KUMAGAI M, GUO X, WANG K Y, et al. Depletion of WNT10A prevents tumor growth by suppressing microvessels and collagen expression[J]. International Journal of Medical Sciences, 2019, 16(3):416-423.

DOI PMID

文章导航

/