研究论文

秸秆木质素降解细菌的筛选及其降解条件优化

  • 韩宇杰 , 1, 2 ,
  • 常潇 1, 2 ,
  • 向海 1, 2 ,
  • 高劲松 3 ,
  • 钟荣珍 , 1, *
展开
  • 1 中国科学院东北地理与农业生态研究所,吉林省草地畜牧重点实验室,长春 130102
  • 2 中国科学院大学,现代农业科学学院,北京 100049
  • 3 中粮生化能源(公主岭)有限公司,长春 136100
* 钟荣珍,研究员,博士生导师,E-mail:

韩宇杰(1999—),男,山西晋城人,硕士研究生,从事反刍动物营养与饲料研究。E-mail:

Office editor: 菅景颖

收稿日期: 2023-01-10

  网络出版日期: 2023-07-11

基金资助

农业农村部科技攻关重大专项(NK2022180203)

中国科学院A类战略先导专项(XDA28020400)

中国科学院A类战略先导专项(XDA28080400)

吉林省科技发展计划项目(20200201140JC)

中国科学院青年创新促进会优秀会员人才专项(Y201949)

Isolation of Straw Lignin-Degrading Bacteria and Optimization of Their Degradation Conditions

  • HAN Yujie , 1, 2 ,
  • CHANG Xiao 1, 2 ,
  • XIANG Hai 1, 2 ,
  • GAO Jinsong 3 ,
  • ZHONG Rongzhen , 1, *
Expand
  • 1 Jilin Provincial Key Laboratory of Grassland Farming, Northeast Institute of Geography and Agroecology, Chinese Academy of Sciences, Changchun 130102, China
  • 2 College of Advanced Agricultural Science, University of Chinese Academy of Sciences, Beijing 100049, China
  • 3 COFCO Bioenergy (Gongzhuling) Co., Ltd., Changchun 136100, China
* professor, E-mail:

Received date: 2023-01-10

  Online published: 2023-07-11

摘要

本试验旨在分离和筛选靶向降解木质素能力强的细菌菌株,并优化其培养条件,应用于秸秆生物质中木质素的降解。利用碱性木质素为唯一碳源的无机盐培养基进行菌株初筛,通过苯胺蓝法进行复筛,对筛选出的菌株进行细菌形态学观察和16S rDNA序列测定,然后以碱性木质素降解率为评价指标,采用单因素和响应面法进行培养条件优化及产酶能力的研究。结果显示:1)筛选出的3株木质素降解细菌BH5、BH8和BJ5经鉴定分别为吉洛氏不动杆菌(Acinetobacter guillouiae)、嗜麦芽窄食单胞菌(Stenotrophomonas maltophilia)和变栖克雷伯氏菌(Klebsiella variicola)。2)菌株BH5在初始pH 6.8、培养温度30.3 ℃、接种量6.3%时木质素降解能力最佳,木质素降解率达到16.72%,所产漆酶(Lac)、木质素过氧化物酶(Lip)和锰过氧化物酶(Mnp)活性分别为1.53、15.65和43.85 U/mL;菌株BH8在初始pH 6.3、培养温度28.4 ℃、接种量4.7%时木质素降解能力最佳,木质素降解率达到18.01%,所产Lac、Lip和Mnp活性分别为4.17、21.66和72.26 U/mL;菌株BJ5在初始pH 6.4、培养温度29.7 ℃、接种量4.1%时木质素降解能力最佳,木质素降解率达到21.65%,所产Lac、Lip和Mnp活性分别为5.94、34.44和90.81 U/mL。综上所述,本试验筛选出的3株木质素降解细菌具有较高的木质素降解能力,这不仅丰富了木质素降解微生物库,同时也为后续应用微生物菌剂发酵秸秆,促进秸秆饲料化的研究提供了理论依据。

本文引用格式

韩宇杰 , 常潇 , 向海 , 高劲松 , 钟荣珍 . 秸秆木质素降解细菌的筛选及其降解条件优化[J]. 动物营养学报, 2023 , 35(7) : 4740 -4751 . DOI: 10.12418/CJAN2023.440

Abstract

The purpose of this study was to isolate and screen bacterial strains with strong ability to target lignin degradation, and optimize their culture conditions for the degradation of lignin in straw biomass. The inorganic salt culture medium with alkaline lignin as the sole carbon source was used for the initial screening of the strains, and the aniline blue method was used for the secondary screening. The bacterial morphology and 16S rDNA sequence of the screened strains were observed, and then the degradation rate of alkaline lignin was used as the evaluation index. The single factor and response surface methods were used to optimize the culture conditions and study the enzyme production ability. The results showed as follows: 1) three strains of lignin degrading bacteria BH5, BH8 and BJ5 were identified as Acinetobacter guillouiae, Stenotrophomonas maltophilia and Klebsiella variicola, respectively. 2) The strain BH5 had the best lignin degradation ability at initial pH 6.8, culture temperature 30.3 ℃ and inoculation amount 6.3%, and the lignin degradation rate reached 16.72%, among which laccase (Lac) activity was 1.53 U/mL, lignin peroxidase (Lip) activity was 15.65 U/mL, and manganese peroxidase (Mnp) activity was 43.85 U/mL; the strain BH8 had the best lignin degradation ability at initial pH 6.3, culture temperature 28.4 ℃ and inoculation amount 4.7%, and the lignin degradation rate reached 18.01%, among which the Lac activity was 4.17 U/mL, Lip activity was 21.66 U/mL, and Mnp activity was 72.26 U/mL; the strain BJ5 had the best lignin degradation ability at initial pH 6.4, culture temperature 29.7 ℃ and inoculation amount 4.1%, and the lignin degradation rate reached 21.65%, among which Lac activity was 5.94 U/mL, Lip activity was 34.44 U/mL, and Mnp activity was 90.81 U/mL. To sum up, the three strains of lignin-degrading bacteria screened in this study have high lignin-degrading ability, which not only enriches the lignin-degrading microbial pool, but also provides theoretical basis for the subsequent research on the application of microbial agents to ferment straw and to promote the feed of straw.

农作物秸秆包括小麦秸秆、玉米秸秆、水稻秸秆等,是最重要和最丰富的生物质能源之一,饲料化是秸秆利用的重要途径之一,不仅可以节约大量粮食,还可以解决畜牧养殖牧草不足的难题[1]。但是由于大量木质素的存在,导致秸秆在草食家畜中的消化利用率仅为30%~40%。木质素不仅为秸秆组织提供强度和抵抗力,还保护碳水化合物免受酶的消化,所以木质素的降解是秸秆木质纤维素利用的关键步骤,决定纤维素和半纤维素的可利用性[2]。木质素是一种高度复杂的芳香族聚合物,是由苯丙烷单元通过醚键和碳-碳键连接所形成三维结构[3],为了提高农作物秸秆饲料的利用率,通常对秸秆进行木质素降解预处理以分解复杂的晶体结构,常用预处理方法包括物理预处理(机械粉碎、热解)和化学预处理(酸水解、碱水解、氧化脱木素、有机溶剂法)[4]。但这些方法通常需要昂贵的设备,消耗较多的能量,甚至产生有毒化合物。与物理预处理和化学预处理方法相比,生物法降解木质素具有操作简单、成本低和环境友好的优点,被认为是一种有前途的预处理方法[5]。微生物在脱木质素过程中起着至关重要的作用,因此有必要进行高效微生物的筛选研究。
自然界中许多种类的微生物具有分泌木质素降解酶的能力,可以有效降解木质素,目前筛选出的微生物有白腐真菌、褐腐真菌和软腐真菌等真菌,α-变形菌、γ-变形菌和放线菌等细菌[6]。与细菌相比,虽然真菌降解木质素的能力较强,研究也较为广泛和深入,然而,到目前为止,真菌的商业生物催化过程尚不可用,部分原因是真菌蛋白质表达和真菌基因操纵的挑战[7]。与真菌相比,细菌具有易于转移和操纵基因的优势,并且细菌酶比真菌酶具有更高的热稳定性和高特异性[8-9]。本研究重点目标为筛选出可有效降解木质素的木质素降解细菌,丰富木质素降解细菌库,为细菌发酵秸秆以提高秸秆饲料利用率提供科学依据。

1 材料与方法

1.1 试验材料

1.1.1 样品来源

由无菌取样铲采集森林土壤、秸秆还田土及腐烂的木材等样品,共20个样本,4 ℃冰箱保存备用。

1.1.2 主要试剂和仪器

碱性木质素、葡萄糖、酒石酸、酒石酸钠、冰乙酸、无水乙酸钠、琥珀酸、琥珀酸钠、苯胺蓝、藜芦醇和硫酸锰,上海麦克林生化科技有限公司;酵母粉、胰蛋白胨和2,2-联氮-二(3-乙基-苯并噻唑-6-磺酸)二铵盐(ABTS),北京酷来搏科技有限公司。
微型pH计(PHS-25),上海越平科学仪器有限公司;超净工作台(SW-CJ-1FD),苏净集团苏州安泰空气技术有限公司;紫外分光光度计(UV-1780),岛津企业管理(中国)有限公司;超高速离心机(Sigma1-14),德国Sigma公司;恒温振荡器[BSD-YX(F)3200]、生化培养箱(SPX-100B-Z),上海博迅医疗生物仪器股份有限公司。

1.1.3 培养基

富集培养基:玉米秸秆粉10.0 g、(NH4)2SO4 2.0 g、Na2HPO4 1.5 g、KH2PO4 1.5 g和MgSO4 0.2 g,蒸馏水定容至1 L。
初筛固体培养基:碱性木质素(唯一碳源)2.0 g、Na2HPO4 0.2 g、KH2PO4 1.0 g、(NH4)2SO4 2.0 g、NaCl 1.0 g、CaCl2 0.5 g、MgSO4 1.0 g和琼脂15 g,蒸馏水定容至1 L。
液体LB培养基:酵母浸粉5.0 g、NaCl 10.0 g、胰蛋白胨10.0 g,蒸馏水定容至1 L,pH=7.2。
固体LB培养基:酵母浸粉5.0 g、NaCl 10.0 g、胰蛋白胨10.0 g和琼脂15 g,蒸馏水定容至1 L。
苯胺蓝鉴别培养基:在固体LB培养基中加入0.4 g/L的苯胺蓝。
木质素降解培养基:碱性木素2.0 g、(NH4)2SO4 2 g、KH2PO4 1.0 g、Na2HPO4 0.2 g和MgSO4 0.5 g,蒸馏水定容至1 L。
木质素产酶培养基:碱性木素2.0 g、(NH4)2SO4 2.0 g、KH2PO4 1.0 g、Na2HPO4 0.2 g、MgSO4 0.5 g和无水葡萄糖0.05 g,蒸馏水定容至1 L。
以上培养基均经121 ℃、1×10⁵ Pa高温蒸汽灭菌20 min。

1.2 试验方法

1.2.1 木质素降解细菌的筛选

将10 g土壤(腐木)、100 mL富集培养基和玻璃珠混合于250 mL锥形瓶中,30 ℃条件下120 r/min振荡培养,3 d后取出静置30 min,取上清液,梯度稀释到10-1~10-6。吸取10-3、10-4、10-5和10-6 4个浓度的悬浮液涂布在初筛固体培养基上,每个浓度重复6次。30 ℃恒温培养箱培养3 d,挑取不同菌落形态细菌进行分离纯化,筛选出20株细菌。采用苯胺蓝脱色法[10]对筛选出的20株细菌进行复筛,筛选出具有木质素降解能力的细菌3株,分别命名为BJ5、BH5和BH8,保存备用。定性筛选板的反应只能反映菌株的木质素酶生产能力,而着色圈的大小和酶活性不一定呈正相关[11]。因此,还需进行定量木质素降解测试,以评估菌株的木质素降解能力。

1.2.2 菌株鉴定

将筛选出的菌株进行形态学观察和分子生物学鉴定,细菌基因组DNA的提取按照细菌基因组DNA提取盒说明书进行,以提取到的菌株基因组DNA为模板,以通用引物27F(5’-AGAGTTTGATCCTGGCTCAG-3’)和1492R(5’-TACGGTTACCTTGTTACGACTT-3’)为引物进行PCR扩增,然后由上海生工生物工程技术服务有限公司进行16S rRNA测序。将测序得到的基因序列在GenBank数据库进行同源性比对,找到与目的菌株亲缘关系最近的菌株,然后用MEGA11软件构建菌株系统发育树。

1.2.3 菌株降解木质素条件优化

1.2.3.1 菌悬液的配制

分别挑取复筛得到的3株细菌的单菌落接种至100 mL液体LB培养基中,120 r/min、37 ℃培养24 h,计数菌落并稀释至1×10⁷ CFU/mL,作为下一步木质素降解试验用的种子液。

1.2.3.2 木质素降解条件优化单因素试验设计

配制浓度分别为20、40、60、80和100 mg/L的碱性木质素水溶液,测定280 nm处吸光度(OD280 nm)值[11-12],并制作木质素标准吸收曲线,得到回归方程y=0.006 9x+0.000 8,R2=0.998 2。
将前面配制的菌悬液以4%(v/v)的接种量接种到100 mL木质素降解培养基的锥形瓶中,120 r/min振荡培养,于第4天取样。准备6个2 mL无菌离心管,摇匀培养基后,分别吸取1 mL液体于2 mL无菌离心管,15 000×g离心10 min,取上清用不加木质素的木质素降解培养基稀释15倍测定OD280 nm值,以未加菌悬液的木质素降解培养基为对照,将OD280 nm值代入回归方程用于计算菌株木质素降解率。
木质素降解率(%)=[(C1-15C2)/C1]×100。
式中:C1为未加菌悬液的木质素降解培养基中木质素的浓度(OD280 nm值);C2为待测样品中木质素的浓度(OD280 nm值)。
(1)适宜培养温度
为菌株提供合适的温度有利于它的生长,从而提高降解能力。根据细菌常见生长温度,将培养温度设定5个水平:10、20、30、40和50 ℃。其他条件设定为:摇床转速120 r/min、接种量4%(v/v)、初始的木质素产酶培养基pH为7.0。培养4 d后测定木质素降解率,每个菌株进行6次平行重复,根据试验结果确定菌株适宜的培养温度。
(2)适宜初始pH
不同微生物生长环境所适宜的pH不同,找出最适合菌株生长的pH可提高降解能力。用配制好的NaOH溶液与HCl溶液调节pH,初始的木质素产酶培养基pH设定5个水平:5、6、7、8和9。其他条件设定为:培养温度30 ℃、接种量4%(v/v)、摇床转速120 r/min。培养4 d后测定木质素降解率,每个菌株进行6次平行重复,根据试验结果确定菌株适宜的初始pH。
(3)适宜接种量
找到合适的接种量非常重要,接种量太少,最终的降解能力得不到提髙,接种量太大,菌与菌之间互相竞争众多营养物质,不利于菌株生长。设定接种量分别为种子液容量的2%、4%、6%、8%和10%(v/v)。其他条件设定为:培养温度30 ℃、初始pH为7.0、摇床转速120 r/min。培养4 d后测定木质素降解率,每个菌株进行6次平行重复,根据试验结果确定菌株适宜的接种量。

1.2.4 培养条件响应面优化设计

单因素试验只能确定大概的最优降解条件的培养温度、接种量、初始pH范围,但是不能探究温度与接菌量、培养温度与初始pH、接种量与初始pH的交互作用,如果单一的考虑每个因素的影响按照传统方法来设置试验,工作量巨大且实施起来也不现实,因此需要采用更为科学的试验方法。本试验采用的是响应面优化法,相对于正交试验的孤立试验点分析,通过响应面分析,可以得到连续的预测模型,能够通过更少的试验次数,更短的试验周期,获得更为准确的试验结果[13]
以单因素试验结果为基础,对发酵培养基的初始pH(A)、温度(B)、接种量(C)进行3因素3水平的Box-Behnken设计。
Box-Behnken设计的因素与水平如表1所示,表中A、B、C分别代表初始pH、温度和接菌量,-1、0、1分别代表选择水平的最低值、平均值和最大值。
表1 Box-Behnken设计的因素与水平

Table 1 Factors and levels of Box-Behnken design

菌株
Strains
因素
Factors
水平Levels
-1 0 1
A:初始pH Initial pH 6 7 8
BH5 B:温度Temperature/℃ 20 30 40
C:接种量Inoculation amount/% 4 6 8
A:初始pH Initial pH 5 6 7
BH8 B:温度Temperature/℃ 20 30 40
C:接种量Inoculation amount/% 2 4 6
A:初始pH Initial pH 5 6 7
BJ5 B:温度Temperature/℃ 20 30 40
C:接种量Inoculation amount/% 2 4 6

1.2.5 菌株产酶能力测定

在响应面优化法得出的最佳产酶条件下,分别将3株细菌的菌悬液以上述响应面优化设计得出的最佳接种量接种到木质素产酶培养基中进行培养,于第4天从产酶培养基中吸取1 mL液体到已灭菌的离心管,11 100×g离心10 min,上清液即为粗酶液。以灭活粗酶液为对照,分别测定漆酶(Lac)、锰过氧化物酶(Mnp)和木质素过氧化物酶(Lip)的活性。Lac活性测定采用ABTS法[14],Mnp活性测定采用MnSO4[15],Lip活性测定采用藜芦醇法[16]。每个菌株进行6次重复测定。

2 结果与分析

2.1 木质素降解细菌筛选

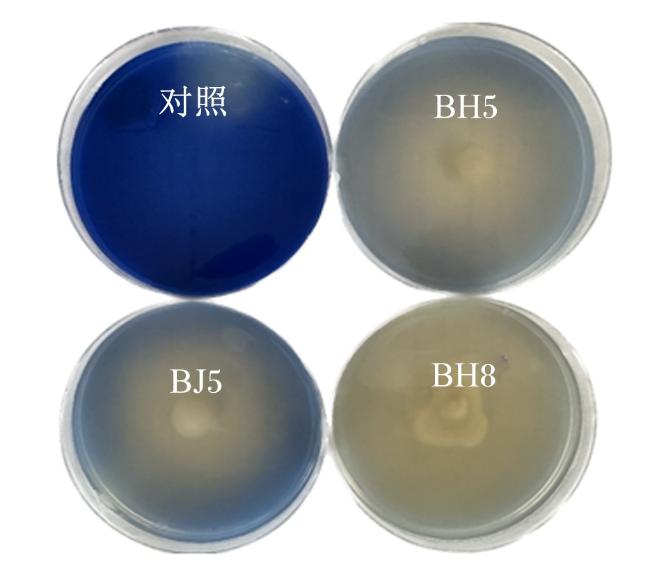
经过苯胺蓝初筛试验发现3株脱色圈直径较大的菌株BH5、BH8和BJ5,结果如图1。与未接种细菌的对照培养平板相比,接种了上述3株细菌的培养平板均有明显褪色。
图1 菌株BH5、BH8和BJ5所产生的脱色圈

Fig.1 Decolorization rings produced by strains BH5, BH8 and BJ5

2.2 菌株鉴定

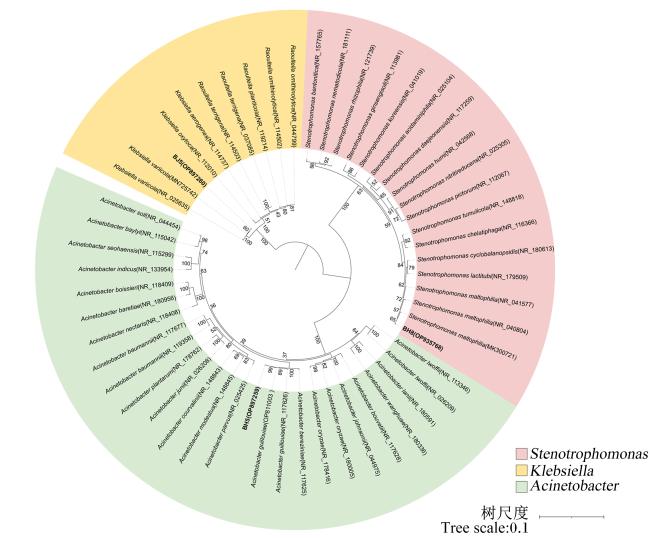
通过测序得到菌株BH5、BH8和BJ5的16S rDNA基因序列,在NCBI的GenBank数据库中进行Blast比对,根据比对结果找到同源性序列(相似性>99%)进行分析,使用MEGA11软件进行多重序列对比分析,按照邻位连接(neighbor-joining,NJ)法构建系统发育树,见图2。结合形态学特征初步确定菌株BH5为吉洛氏不动杆菌(Acinetobacter guillouiae),菌株BH8为嗜麦芽窄食单胞菌(Stenotrophomonas maltophilia),菌株BJ5为变栖克雷伯氏菌(Klebsiella variicola)。
图2 菌株BH5、BH8和BJ5基于16S rDNA基因序列构建的系统发育树

Stenotrophomonas:窄食单胞菌属;Klebsiella:克雷伯氏菌属;Acinetobacter:不动杆菌属;Stenotrophomonas maltophilia:嗜麦芽窄食单胞菌;Stenotrophomonas lactitubi:乳酸寡养单胞菌;Stenotrophomonas cyclobalanopsidis:环冈窄食单胞菌 Stenotrophomonas chelatiphaga:螯合窄食单胞菌;Stenotrophomonas tumulicola:土氏窄食单胞菌;Stenotrophomonas pictorum:窄食单胞菌属海征微杆菌;Stenotrophomonas nitritireducens 硝化窄食单胞菌;Stenotrophomonas humi:矮缩窄食单胞菌;Stenotrophomonas daejeonensis:大田窄食单胞菌;Stenotrophomonas acidaminiphila:嗜酸寡养单胞菌;Stenotrophomonas koreensis:狭食单胞菌;Stenotrophomonas ginsengisoli:人参窄食单胞菌;Stenotrophomonas rhizophila:嗜根窄食单胞菌;Stenotrophomonas nematodicola:栖线虫寡养单胞菌;Stenotrophomonas bentonitica:弯曲窄食单胞菌;Klebsiella variicola:变栖克雷伯氏菌;Klebsiella oxytoca:氧化克雷伯氏菌;Klebsiella aerogenes:产气克雷伯氏菌;Raoultella terrigena:抗坏血酸劳尔特氏菌;Raoultella planticola:植物劳尔特氏菌;Raoultella ornithinolytica:解鸟氨酸劳尔特氏菌;Raoultella omithinolytica:溶密拉乌尔特菌;Acinetobacter parvus:微小不动杆菌;Acinetobacter junii:琼氏不动杆菌;Acinetobacter lwoffii:鲁氏不动杆菌;Acinetobacter soli:索氏不动杆菌;Acinetobacter johnsonii:约氏不动杆菌;Acinetobacter baylyi:贝氏不动杆菌;Acinetobacter seohaensis:溶血性不动杆菌;Acinetobacter bereziniae:别雷斯不动杆菌;Acinetobacter guillouiae:桂林不动杆菌;Acinetobacter bouvetii:包氏不动杆菌;Acinetobacter baumannii: 鲍曼不动杆菌;Acinetobacter nectaris: 邬氏不动杆菌;Acinetobacter boissieri:波氏不动杆菌;Acinetobacter indicus:印度不动杆菌;Acinetobacter courvalinii:库瓦利尼不动杆菌;Acinetobacter modestus:莫德斯托斯不动杆菌;Acinetobacter plantarum:植物不动杆菌;Acinetobacter oryzae:米不动杆菌;Acinetobacter wanghuae:王华不动杆菌;Acinetobacter lanii:兰氏不动杆菌;Acinetobacter baretiae:贝尔斯不动杆菌。

括号中为GenBank登录号;分支位置中的数字表示Bootstrap支持率;标尺所示长度为0.1核苷酸置换率。The GenBank accession number is in brackets; the number in each branch point denote the percentages supported by bootstrap; the length as indicated by bar means the nucleotide substitution rate of 0.1.

Fig.2 Phylogenetic tree constructed by strains BH5, BH8 and BJ5 based on 16S rDNA gene sequence

2.3 木质素降解条件优化

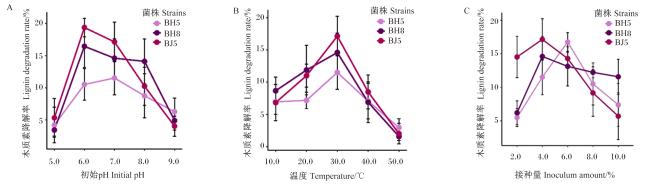
当pH处在5~9时3株细菌均可以正常生长并具有降解木质素的能力。当pH处在6~8时,菌株BH5的木质素降解率较高,pH=7时达到最大降解率(11.52%);当pH处在5~7时,菌株BH8的木质素降解率较高,pH=6时达到最大降解率(16.45%);当pH处在5~7时,菌株BJ5的木质素降解率较高,pH=6时达到最大降解率(19.37%)(图3-A)。因此,菌株BH5、BH8和BJ5的初始pH分别选择6~8、5~7和5~7进行后续试验。
图3 初始pH(A)、培养温度(B)和接种量(C)对木质素降解率的影响

Fig.3 Effects of initial pH (A), culture temperature (B) and inoculum amount (C) on lignin degradation rate

当培养温度处在10~50 ℃时3株细菌对木质素的降解情况差别不大,均是在20~40 ℃时具有较高的降解率,在30 ℃时达到最大降解率,菌株BH5、BH8和BJ5的最大降解率分别为11.52%、14.60%和17.14%(图3-B)。因此,选择培养温度20~40 ℃进行后续试验。
接种量对3株细菌降解木质素的影响见图3-C。接种量在4%~8%时菌株BH5的木质素降解率较高,在接种量为6%时达到最大降解率(16.75%),因此菌株BH5选择4%~8%接种量进行后续试验;当接种量为2%~4%时,菌株BH8、BJ5有较高的木质素降解率,均在接种量为4%时达到最大降解率,分别为14.60%、17.14%,因此菌株BH8、BJ5选择2%~6%接种量进行后续试验。

2.4 培养条件的响应面优化

根据Box-Behnken中心复合设计原理,以初始pH(A)、温度(B)和接种量(C)3个为自变量,以木质素降解率为因变量设计3因素3水平的响应面分析试验,具体结果如表2所示。
表2 响应面法试验结果

Table 2 Test results of response surface method

试验号
Test No.
A:初始pH
Initial pH
B:温度
Temperature/℃
C:接种量
Inoculum amount/%
木质素降解率Lignin degradation rate/%
BH5 BH8 BJ5
1 0 0 0 15.28 16.45 19.37
2 1 0 -1 8.75 6.20 14.52
3 0 0 0 17.28 15.45 19.50
4 1 1 0 6.51 7.14 8.49
5 1 0 1 8.85 13.12 14.29
6 0 1 -1 7.07 6.98 4.60
7 -1 0 -1 10.52 3.01 4.67
8 -1 0 1 11.71 4.92 7.89
9 0 0 0 14.81 16.32 20.21
10 1 -1 0 6.99 11.89 11.01
11 -1 1 0 9.12 4.58 4.54
12 0 -1 -1 7.18 5.47 7.34
13 0 0 0 16.99 16.82 20.62
14 0 0 0 16.75 19.53 18.71
15 0 1 1 9.88 9.17 9.36
16 0 -1 1 8.81 12.21 6.91
17 -1 -1 0 7.98 2.58 2.68

2.4.1 模型建立及方差分析

采用Design Expert 13软件分别对BH5(Y1)、BH8(Y2)、BJ5木质素降解率(Y3)进行多元回归拟合分析,得到回归模型:
Y1=16.22-1.03A+0.202 5B+0.716 3C-
0.405 0AB-0.272 5AC+0.295 0BC-3.42A2-
5.15 B2-2.84C2;
Y2=16.91+2.91A-0.505 0B+2.22C-1.69AB+
1.25 AC-1.14BC-6.01A2-
4.36 B2-4.10C2;
Y3=19.68+3.57A-0.118 7B+0.915 0C-1.09AB-
0.862 5AC+1.30BC-4.86A2-
8.15B2-4.48C2
对二次模型进行方差和显著性分析,结果分别见表3表4表5。由表中数据可知,3株细菌的回归模型P值均小于0.001,说明显著性极高;失拟项均大于0.05,模型决定系数(R2)均在0.9以上,说明模型与试验情况拟合良好,可以用来分析和预测最佳木质素降解条件。BH5模型中,一次项A对响应值木质素降解率的影响达到显著水平(P<0.05),一次项B和C对响应值木质素降解率的影响不显著(P>0.05);交互项AB、AC和BC对响应值木质素降解率的影响均不显著(P>0.05)。BH8模型中,一次项A和C对响应值木质素降解率的影响达到极显著水平(P<0.01),一次项B对响应值木质素降解率的影响不显著(P>0.05);交互项AB对响应值木质素降解率的影响显著(P<0.05),交互项AC和BC对响应值木质素降解率的影响不显著(P>0.05)。BJ5模型中,一次项A对响应值木质素降解率的影响达到极显著水平(P<0.01),一次项B对响应值木质素降解率的影响不显著(P>0.05),一次项C对响应值木质素降解率的影响显著(P<0.05);交互项AB和BC对响应值木质素降解率的影响显著(P<0.05),而交互项AC对响应值木质素降解率的影响则不显著(P>0.05)。根据3株细菌初始pH、温度和接种量的F值可以看出,这3种因素对3株细菌的木质素降解率的影响大小均为:初始pH>接种量>温度。
表3 BH5的木质素降解率回归模型分析

Table 3 Regression model analysis of lignin degradation rate of BH5

方差来源
Sources of variation
平方和
Sum of squares
自由度
df
均方差
Mean squares
F
F-value
P
P-value
模型Model 229.99 9 25.55 28.61 0.000 1
A 8.47 1 8.47 9.48 0.017 9
B 0.328 1 1 0.328 1 0.367 2 0.563 6
C 4.10 1 4.10 4.59 0.069 3
AB 0.656 1 1 0.656 1 0.734 4 0.419 8
AC 0.297 0 1 0.297 0 0.332 5 0.582 3
BC 0.348 1 1 0.348 1 0.389 7 0.552 3
A2 49.38 1 49.38 55.28 0.000 1
B2 111.55 1 111.55 124.88 <0.000 1
C2 33.95 1 33.95 38.01 0.000 5
误差Residual 6.25 7 0.893 3
失拟项Lack of fit 1.38 3 0.461 4 0.379 0 0.774 2
纯误差Pure error 4.87 4 1.22
决定系数R2 0.973 5
校正决定系数R2Adj 0.939 5

A: 初始pH initial pH;B:温度 temperature;C:接种量 inoculum amount。表4表5同 the same as Table 4 and Table 5

表4 BH8的木质素降解率回归模型分析

Table 4 Regression model analysis of lignin degradation rate of BH8

方差来源
Sources of variation
平方和
Sum of squares
自由度
df
均方差
Mean squares
F
F-value
P
P-value
模型Model 468.84 9 52.09 37.29 <0.000 1
A 67.63 1 67.63 48.41 0.000 2
B 2.29 1 2.29 1.64 0.241 3
C 39.43 1 39.43 28.22 0.001 1
AB 11.39 1 11.39 8.15 0.024 5
AC 6.28 1 6.28 4.49 0.071 8
BC 5.18 1 5.18 3.70 0.095 7
A2 151.87 1 151.87 108.70 <0.000 1
B2 80.07 1 80.07 57.31 0.000 1
C2 70.63 1 70.63 50.56 0.000 2
误差Residual 9.78 7 1.40
失拟项Lack of fit 0.216 1 3 0.072 0 0.030 1 0.991 9
纯误差Pure error 9.56 4 2.39
决定系数R2 0.979 6
校正决定系数R2Adj 0.953 3
表5 BJ5的木质素降解率回归模型分析

Table 5 Regression model analysis of lignin degradation rate of BJ5

方差来源
Sources of variation
平方和
Sum of squares
自由度
df
均方差
Mean squares
F
F-value
P
P-value
模型Model 635.16 9 70.57 111.13 <0.000 1
A 101.75 1 101.75 160.21 <0.000 1
B 0.112 8 1 0.112 8 0.177 6 0.686 1
C 6.70 1 6.70 10.55 0.014 1
AB 4.80 1 4.80 7.55 0.028 6
AC 2.98 1 2.98 4.69 0.067 2
BC 6.73 1 6.73 10.60 0.013 9
A2 99.29 1 99.29 156.34 <0.000 1
B2 279.40 1 279.40 439.94 <0.000 1
C2 84.64 1 84.64 133.27 <0.000 1
误差Residual 4.45 7 0.635 1
失拟项Lack of fit 2.21 3 0.737 2 1.32 0.384 6
纯误差Pure error 2.23 4 0.558 5
决定系数R2 0.993 0
校正决定系数R2Adj 0.984 1

2.4.2 响应面分析

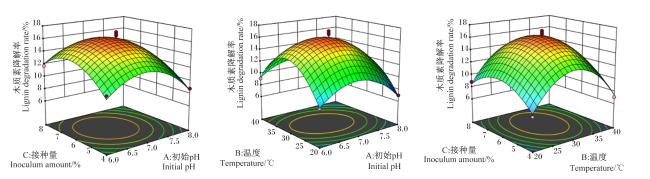
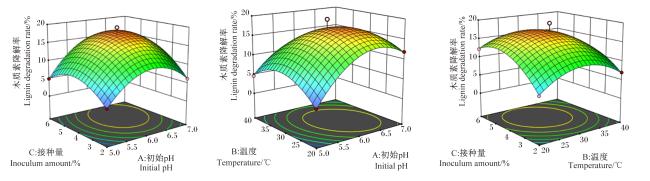
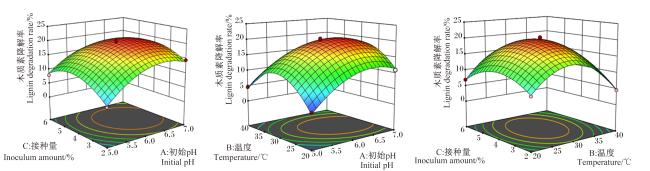
为研究3种因素交互作用对3株细菌木质素降解率的影响,分别绘制各因素交互效应的3D响应曲面图(图4图5图6),图形底部为其等高线投影。当培养时间为4 d,保持接种量不变,初始pH由6.0增加至8.0,温度由20 ℃增加至40 ℃,菌株BH5的木质素降解率呈先升高后下降趋势,凸起顶点处即为响应优化最大值。同样,初始pH与接种量及温度与接种量的交互作用对菌株BH5木质素降解率的影响趋势相同。3种因素交互作用对菌株BH8、BJ5木质素降解率的影响与菌株BH5类似,均是先升高后降低,在中间某一点处达到最大。
图4 初始pH、温度和接种量交互作用对BH5木质素降解率的影响

Fig.4 Effects of initial pH, temperature and inoculum amount on lignin degradation rate of BH5

图5 初始pH、温度和接种量交互作用对BH8木质素降解率的影响

Fig.5 Effects of initial pH, temperature and inoculum amount on lignin degradation rate of BH8

图6 初始pH、温度和接种量交互作用对BJ5木质素降解率的影响

Fig.6 Effects of initial pH, temperature and inoculum amount on lignin degradation rate of BJ5

2.4.3 培养条件优化及验证结果

运用Design-Expert 13软件中Optimization功能对所建立的数学模型进行最优化分析,得到3株细菌的最佳培养条件参数。为验证仿真优化参数的可靠性,在最优参数条件下进行验证试验,每株细菌重复6次,具体结果见表6。菌株BH5、BH8和BJ5木质素降解率的测定值与预测值的误差率分别为2.2%、1.3%和5.9%,误差较小,说明响应面法优化的木质素降解条件具有真实性和实际应用价值。
表6 最佳培养条件下仿真与试验结果对比

Table 6 Comparison of simulation and test results under optimal cultivation conditions

菌株
Strains
最佳培养条件
Optimal cultivation conditions
木质素降解率
Lignin degradation rate/%
误差率
Error rate/%
初始pH
Initial pH
温度
Temperature/℃
接种量
Inoculum amount/%
测定值
Tested value
预测值
Estimated value
BH5 6.8 30.3 6.3 16.72 16.35 2.2
BH8 6.3 28.4 4.7 18.01 17.77 1.3
BJ5 6.4 29.7 4.1 21.65 20.36 5.9

2.5 3株细菌的产酶能力研究

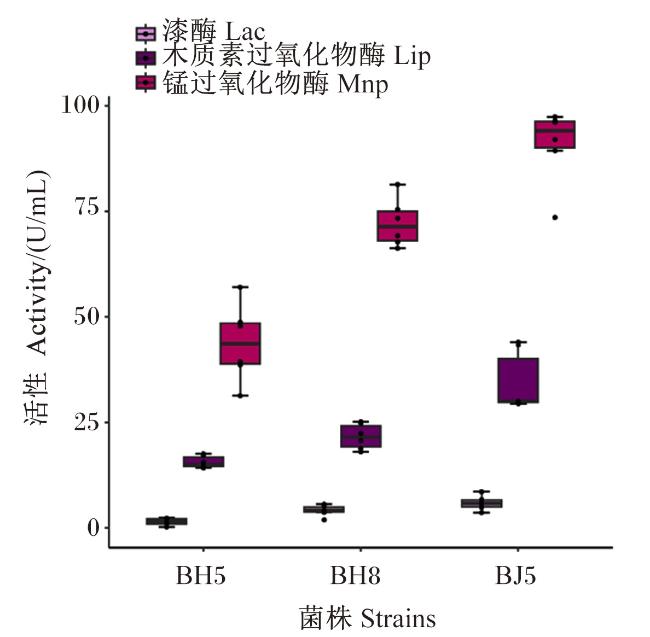
在上述最佳培养条件下,对3株细菌的产酶能力进行研究,结果如图7所示。菌株BH5、BH8和BJ5均具有较高的产Lip和Mnp能力,所产Lip的活性分别达到15.65、21.66和34.44 U/mL,所产Mnp的活性分别达到43.85、72.26和90.81 U/mL;3株细菌的产Lac能力都比较小,所产Lac活性分别为1.53、4.17和5.94 U/mL。综合来看,菌株BJ5所产木质素降解酶的活性总体较高,BH8次之,BH5最小。
图7 菌株BH5、BH8、BJ5所产木质素降解酶活性

Fig.7 Lignin degrading enzyme activities of strains BH5, BH8 and BJ5

3 讨论

有关细菌降解木质素的研究目前还处于初级阶段,细菌系统由于其快速生长和强大的环境适应性而引起了越来越多的关注。谢长校等[17]综述了细菌降解木质素的研究进展,认为细菌降解木质素在未来工业应用上具有较大潜力。本研究从自然环境如土壤、腐木中筛选出了3株潜在的木质素降解细菌BH5、BH8和BJ5,然后通过单因素试验和响应面法确定了它们的最佳木质素降解条件,并在最佳培养条件下检测了它们的相关木质素降解酶活性,结果显示3株细菌均具有较高的木质素降解能力,能够有效地分泌Lac、Lip和Mnp,其中菌株BJ5的木质素降解能力最强,在最佳培养条件下木质素降解率可以达到21.65%。
熊乙[18]筛选出2株不动杆菌——约氏不动杆菌(Acinetobacter johnsonii)、鲁菲不动杆菌(Acinetobacter. lwoffii),它们在最佳培养条件下的木质素降解率可达到30%以上。醋酸钙不动杆菌(Acinetobacter calcoaceticus)、坦氏不动杆菌(Acinetobacter tandoii)也相继被证明有木质素降解能力[19-20]。本次研究中筛选出的BH5为吉洛氏不动杆菌,为不动杆菌属降解木质素的菌株又新添一员,但与其他不动杆菌属的细菌相比,其木质素降解率稍低,为16.72%,这可能是菌种间的差异造成的。韩月颖等[21]从长白山森林土壤中筛选出一株耐低温木质素降解细菌嗜麦芽窄食单胞菌LS-1,在15 ℃时仍具有较高木质素降解酶活性,说明嗜麦芽窄食单胞菌可能具有耐低温的特性。本试验筛选出的BH8为嗜麦芽窄食单胞菌,在低温(10~15 ℃)时所体现出的比BH5、BJ5具有更高的木质素降解率也侧面说明这一点,但是具体的原因还需进一步研究。有研究表明克雷伯氏菌具有作为木质素降解酶源的潜力,因其呈现出一种有趣的基因库,可以通过分离和纯化它们的酶和基因应用于异源系统,产酸克雷伯氏菌(Klebsiella oxytoca)和肺炎克雷伯氏菌(Klebsiella pneumoniae)的基因已经被克隆并在大肠杆菌中表达,用于生产工业发酵过程中所需的酶[22]。Melo-Nascimento等[23]筛选出一株变栖克雷伯氏菌P1CD1,并通过对其完整基因组的分析发现这种细菌使用替代路线,即通过裂解β-芳基醚连接以及通过β-酮己二酸途径降解木质素片段,而不是传统路线来降解木质素,这可能是BJ5具有较高木质素降解率的原因。本研究筛选出的这3株细菌在未来秸秆饲料预处理菌剂的开发和应用方面具有良好的前景。

4 结论

本试验筛选出3株在木质素降解方面有很大的潜力的细菌,鉴定并命名为吉洛氏不动杆菌BH5、嗜麦芽窄食单胞菌BH8和变栖克雷伯氏菌BJ5。菌株BH5降解木质素的最适条件为:初始pH 6.8、培养温度30.3 ℃、接种量6.3%;菌株BH8降解木质素的最适条件为:初始pH 6.3、培养温度28.4 ℃、接种量4.7%;菌株BJ5降解木质素的最适条件为:初始pH 6.4、培养温29.7 ℃、接种量4.1%。菌株BH5、BH8和BJ5的木质素降解率在最佳培养条件下分别达到了16.72%、18.01%和21.65%,所产Lip活性分别为15.65、21.66和34.44 U/mL,所产Mnp活性分别为43.85、72.26和90.81 U/mL,所产Lac活性分别为1.53、4.17和5.94 U/mL。由此可见,本试验筛选出的3株木质素降解细菌具有较高的木质素降解能力,是木质素降解细菌库的重要补充,在秸秆饲料化中具有重要作用,是秸秆资源利用的优质微生物菌种资源。
[1]
TIAN S Q, ZHAO R Y, CHEN Z C. Review of the pretreatment and bioconversion of lignocellulosic biomass from wheat straw materials[J]. Renewable & Sustainable Energy Reviews, 2018, 91:483-489.

[2]
SAWATDEENARUNAT C, SURENDRA K C, TAKARA D, et al. Anaerobic digestion of lignocellulosic biomass:challenges and opportunities[J]. Bioresource Technology, 2015, 178:178-186.

DOI

[3]
ATIWESH G, PARRISH C C, BANOUB J, et al. Lignin degradation by microorganisms:a review[J]. Biotechnology Progress, 2022, 38(2):e3226.

[4]
ZHAO L, SUN Z F, ZHANG C C, et al. Advances in pretreatment of lignocellulosic biomass for bioenergy production:challenges and perspectives[J]. Bioresource Technology, 2022, 343:126123.

DOI

[5]
ZHANG Y, DING Z L, SHAHADAT HOSSAIN M, et al. Recent advances in lignocellulosic and algal biomass pretreatment and its biorefinery approaches for biochemicals and bioenergy conversion[J]. Bioresource Technology, 2023, 367:128281.

DOI

[6]
JANUSZ G, PAWLIK A, SULEJ J, et al. Lignin degradation:microorganisms,enzymes involved,genomes analysis and evolution[J]. FEMS Microbiology Reviews, 2017, 41(6):941-962.

DOI

[7]
BUGG T D H, AHMAD M, HARDIMAN E M, et al. The emerging role for bacteria in lignin degradation and bio-product formation[J]. Current Opinion in Biotechnology, 2011, 22(3):394-400.

DOI PMID

[8]
SUMAN S K, DHAWARIA M, TRIPATHI D, et al. Investigation of lignin biodegradation by Trabulsiella sp. isolated from termite gut[J]. International Biodeterioration & Biodegradation, 2016, 112:12-17.

[9]
KUMAR R, SINGH S, SINGH O V. Bioconversion of lignocellulosic biomass:biochemical and molecular perspectives[J]. Journal of Industrial Microbiology & Biotechnology, 2008, 35(5):377-391.

[10]
CAMARERO S, IBARRA D, MARTÍNEZ M J, et al. Lignin-derived compounds as efficient laccase mediators for decolorization of different types of recalcitrant dyes[J]. Applied and Environmental Microbiology, 2005, 71(4):1775-1784.

DOI PMID

[11]
SU Y J, YU X X, SUN Y, et al. Evaluation of screened lignin-degrading fungi for the biological pretreatment of corn stover[J]. Scientific Reports, 2018, 8(1):5385.

DOI PMID

[12]
李灵灵, 王敬红, 赵铎, 等. 木质素降解菌BYL-7的筛选及降解条件优化[J]. 微生物学通报, 2020, 47(12):4059-4071.

LI L L, WANG J H, ZHAO D, et al. Screening of lignin degrading strain BYL-7 and optimization of degradation conditions[J]. Microbiology, 2020, 47(12):4059-4071. (in Chinese)

[13]
王永菲, 王成国. 响应面法的理论与应用[J]. 中央民族大学学报(自然科学版), 2005, 14(3):236-240.

WANG Y F, WANG C G. The application of response surface methodology[J]. Journal of Minzu University of China (Natural Sciences Edition), 2005, 14(3):236-240. (in Chinese)

[14]
WOLFENDEN B S, WILLSON R L. Radical-cations as reference chromogens in kinetic studies of ono-electron transfer reactions:pulse radiolysis studies of 2,2’-azinobis-(3-ethylbenzthiazoline-6-sulphonate)[J]. Journal of the Chemical Society,Perkin Transactions 2, 1982, 2(7):805-812.

[15]
WARIISHI H, VALLI K, GOLD M H. Manganese(Ⅱ) oxidation by manganese peroxidase from the basidiomycete Phanerochaete chrysosporium. Kinetic mechanism and role of chelators[J]. Journal of Biological Chemistry, 1992, 267(33):23688-23695.

DOI

[16]
TIEN M, KIRK T K. Lignin-degrading enzyme from Phanerochaete chrysosporium:purification,characterization,and catalytic properties of a unique H2O2-requiring oxygenase[J]. Proceedings of the National Academy of Sciences of the United States of America, 1984, 81(8):2280-2284.

[17]
谢长校, 孙建中, 李成林, 等. 细菌降解木质素的研究进展[J]. 微生物学通报, 2015, 42(6):1122-1132.

XIE C X, SUN J Z, LI C L, et al. Exploring the lignin degradation by bacteria[J]. Microbiology, 2015, 42(6):1122-1132. (in Chinese)

[18]
熊乙. 木质纤维素降解菌的筛选鉴定及降解产物研究[D]. 硕士学位论文. 晋中: 山西农业大学, 2019:43-49.

XIONG Y. Screening and identification of lignocellulose degrading bacteria and degradation products research[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2019:43-49. (in Chinese)

[19]
HO M T, WESELOWSKI B, YUAN Z C. Complete genome sequence of Acinetobacter calcoaceticus CA16,a bacterium capable of degrading diesel and lignin[J]. Genome Announcements, 2017, 5(24):e00494-17.

[20]
VAN DEXTER S, BOOPATHY R. Biodegradation of phenol by Acinetobacter tandoii isolated from the gut of the termite[J]. Environmental Science and Pollution Research International, 2019, 26(33):34067-34072.

DOI

[21]
韩月颖, 张喜庆, 曲云鹏, 等. 一株低温木质素降解菌的筛选、产酶优化及酶学性质[J]. 微生物学通报, 2021, 48(10):3700-3713.

HAN Y Y, ZHANG X Q, QU Y P, et al.Screening, enzyme-production optimization and enzymatic properties of a low-temperature lignin-degrading bacteria[J]. Microbiology, 2021, 48(10):3700-3713. (in Chinese)

[22]
MELO-NASCIMENTO A O D S, TREUMANN C, NEVES C, et al. Functional characterization of ligninolytic Klebsiella spp. strains associated with soil and freshwater[J]. Archives of Microbiology, 2018, 200(8):1267-1278.

DOI

[23]
MELO-NASCIMENTO A O D S, SANT ANNA B M M, GONÇALVES C C, et al. Complete genome reveals genetic repertoire and potential metabolic strategies involved in lignin degradation by environmental ligninolytic Klebsiella variicola P1CD1[J]. PLoS One, 2020, 15(12):e0243739.

文章导航

/