研究论文

麝鼠繁殖期和非繁殖期肠道微生物组成的比较分析

  • 杨潇瀛 ,
  • 宋丰成 ,
  • 彭芃 ,
  • 徐义舒 ,
  • 高福利 ,
  • 张浩林 ,
  • 韩莹莹 ,
  • 翁强 ,
  • 袁峥嵘 , *
展开
  • 北京林业大学生物科学与技术学院,北京 100083
* 袁峥嵘,副教授,硕士生导师,E-mail:

杨潇瀛(1995—),女,河北张家口人,硕士研究生,从事肠道微生物与生殖生物学研究。E-mail:

Office editor: 菅景颖

收稿日期: 2022-05-20

  网络出版日期: 2023-07-11

基金资助

国家自然科学基金项目资金资助(32272859)

大学生创新创业训练计划资助项目(S202210022048)

大学生创新创业训练计划资助项目(X202210022057)

Comparative Analysis of Gut Microbiota Composition of Muskrat (Ondatra zibethicus) between Breeding Season and Non-Breeding Season

  • YANG Xiaoying ,
  • SONG Fengcheng ,
  • PENG Peng ,
  • XU Yishu ,
  • GAO Fuli ,
  • ZHANG Haolin ,
  • HAN Yingying ,
  • WENG Qiang ,
  • YUAN Zhengrong , *
Expand
  • College of Biological Sciences and Technology, Beijing Forestry University, Beijing 100083, China
* associate professor, E-mail:

Received date: 2022-05-20

  Online published: 2023-07-11

摘要

肠道中存在的大量微生物在协同进化和相互选择下与宿主形成了一个动态稳定的环境,其组成受多方面因素影响。本试验旨在比较繁殖期与非繁殖期麝鼠肠道微生物组成的差异,为麝鼠的高效养殖提供理论参考。在繁殖期与非繁殖期各取5只麝鼠,基于Illumina MiSeq测序平台对盲肠内容物进行16S rRNA基因测序。结果显示:α多样性分析表明麝鼠非繁殖期肠道微生物丰富度和均匀度高于繁殖期,β多样性分析表明麝鼠繁殖期与非繁殖期肠道微生物存在一定差异。物种组成分析表明麝鼠肠道微生物中优势菌门为拟杆菌门(Bacteroidetes)和厚壁菌门(Firmicutes),优势菌属为普氏菌属(Prevotella)、巴恩斯氏菌属(Barnesiella)、梭菌属ⅩⅣa簇(Clostridium_ⅩⅣa)和瘤胃球菌属(Ruminococcus)。物种差异分析表明,相对于非繁殖期,麝鼠在繁殖期有44个菌群的相对丰度减少,有52个菌群的相对丰度增加;在非繁殖期毛螺菌科(Lachnospiraceae)和梭菌目(Clostridiales)的相对丰度显著增加(P<0.05),在繁殖期鞘脂杆菌科(Sphingobacteriaceae)、梭菌科1(Clostridiaceae_1)、消化链球菌科(Peptostreptococcaceae)、弯曲菌科(Campylobacteraceae)、肠杆菌科(Enterobacteriaceae)的相对丰度显著增加(P<0.05)。功能预测显示麝鼠繁殖期多数差异菌群富集于代谢相关通路,包括氨基酸代谢、辅助因子和维生素代谢以及能量代谢。由此可见,与非繁殖期麝鼠相比,繁殖期麝鼠肠道微生物组成发生了改变,且差异菌群多富集于营养代谢相关通路,有利于保障麝鼠繁殖活动。

本文引用格式

杨潇瀛 , 宋丰成 , 彭芃 , 徐义舒 , 高福利 , 张浩林 , 韩莹莹 , 翁强 , 袁峥嵘 . 麝鼠繁殖期和非繁殖期肠道微生物组成的比较分析[J]. 动物营养学报, 2023 , 35(7) : 4752 -4760 . DOI: 10.12418/CJAN2023.441

Abstract

A large number of microorganisms in the gut have formed a dynamic and stable environment with the host under co-evolution and mutual selection, and their composition is affected by many factors. In this study, the composition of the gut microbiota of muskrat (Ondatra zibethicus) were investigated between the breeding season and non-breeding season, and the purpose was to provide a theoretical reference for the efficient farming of muskrat. The cecal contents from five muskrats at each season (breeding season and non-breeding season) were processed for 16S rRNA sequencing based on the Illumina MiSeq sequencing platform. Results showed as follows: α-diversity analysis showed that the richness and evenness of gut microbiota in the non-breeding season were higher than those in the breeding season. β-diversity analysis indicated differences in the gut microbiota between the breeding season and non-breeding season. Species taxonomy analysis revealed that the dominant phyla in the gut microbiota of muskrats were Bacteroidetes and Firmicutes, and the dominant bacteria were Prevotella, Barnesiella, Clostridium_ⅩⅣa, and Ruminococcus. The analysis of the species differences in the gut microbiota showed that the relative abundances of 44 bacterial groups decreased and 52 bacterial groups increased in the breeding season relative to the non-breeding season. The relative abundances of Lachnospiraceae and Clostridiales significantly increased in the non-breeding season (P<0.05), and the relative abundances of Sphingobacteriaceae, Clostridiaceae_1, Peptostreptococcaceae, Campylobacteraceae, and Enterobacteriaceae significantly increased in the breeding season (P<0.05). The functional prediction results showed that most of the gut differential microbiota in the breeding season were enriched in the metabolism pathways, including the metabolism of other amino acids, the metabolism of cofactors and vitamins and energy metabolism. It can be seen that the composition of the gut microbiota of muskrats has changed in the breeding season relative to non-breeding season, and most differential microbiota in the breeding season are enriched in the nutrient metabolism pathways which is conducive to ensuring the reproductive activity of muskrats.

在一年中特定时间开始的繁殖活动称为季节性繁殖,这代表了机体一种适应性能量分配策略,动物通过该策略调节繁殖和生存行为之间的权衡。冬季恶劣的环境和食物短缺促进了能量从非必要功能(包括繁殖)向对生存至关重要的功能(例如产热)转变。相比之下,春季气候温和、食物丰富,最适合母体的成功繁殖和后代的生存[1]。脊椎动物的繁殖主要受下丘脑-垂体-性腺轴(hypothalamic-pituitary-gonadal axis,HPG轴)的调节。促性腺激素释放激素从下丘脑释放,诱导垂体前叶分泌促性腺激素、促黄体生成素和促卵泡激素。反过来,促性腺激素激活性腺功能并引发繁殖活动。在这种情况下,季节性繁殖是可通过在一年中的适当时间激活HPG轴来实现的[2]。除此之外,日照时间、雌激素、神经肽、亲吻素(kisspeptin)、促性腺激素抑制激素、甲状腺和许多其他环境因素(如食物、水、空间和气候)的变化也会对繁殖产生影响[3]。近年来,越来越多的研究表明肠道微生物在繁殖中也发挥着重要的作用。肠道微生物是存在于消化系统内的数万亿微生物,包括细菌、病毒和一些在出生后就在消化道中定植的真核生物,具有高度多样化[4]。肠道微生物群与宿主相互作用,影响宿主的健康和适应性,可以通过各种复杂的机制与宿主的远端器官(包括大脑、肝脏、肌肉以及睾丸)进行交流[5]。在生殖方面,雄激素可以通过复杂的途径显著重塑肠道微生物群[6]。反过来,肠道微生物群也被发现可以调节雄激素的产生和代谢过程,甚至可以侵入血睾屏障(blood-testis barrier,BTB)来调节精子发生[7]。Zhang等[8]通过代谢组将睾丸功能和肠道微生物群调节联系起来。Lundy等[9]研究了胃肠道微生物群与男性生殖之间的关系,发现不育男性的直肠中厌氧球菌属(Anaerococcus)的丰度降低,而毛螺菌科(Lachnospiraceae)、柯林氏菌属(Collinsella)和粪球菌属(Coprococcus)的丰度增加。
麝鼠(Ondatra zibethicus)属于哺乳纲(Mammalia),啮齿目(Rodentia),仓鼠科(Circetidae),麝鼠属(Ondatra),是一种具有较高经济价值的农林经济动物,可进行人工养殖。麝鼠为草食性动物,食性广泛,主要以植物为主,在自然界中多喜食水生植物的嫩芽、枝叶、果实及鲜嫩的块根、块茎等,有时也食一些小鱼、蛙、蚌、虾等水生小动物[10]。麝鼠具有季节性繁殖特点,繁殖期从3月末或4月初开始到8月中旬终止,之后开始为过冬做准备[11]。麝鼠繁殖力很强,年产3胎左右,南方气候温和产胎数较多,北方严寒地区产胎数较少,平均每胎产仔6~9只,妊娠期25~28 d,哺乳期20 d左右[12]。然而,还没有相关研究报道麝鼠肠道微生物结构和功能在繁殖期如何改变以维持机体正常繁殖性能。因此,本研究旨在研究繁殖期和非繁殖期麝鼠肠道微生物组成差异,并探索其功能差异,为进一步确保麝鼠的高效养殖奠定基础。

1 材料与方法

1.1 试验动物

分别于2021年1月(非繁殖期)和2021年5月(繁殖期)在河北省辛集市某麝香鼠养殖基地购买繁殖期和非繁殖期雄性成年麝鼠各5只。采用二氧化碳(CO2)吸入法将试验动物处死后,用无菌解剖器具解剖,收集盲肠内容物立即置入液氮,随后保存在-80 ℃冰箱,用于16S rRNA扩增子测序。以上关于动物试验操作程序均严格按照北京林业大学动物伦理委员会动物处理和试验操作规范要求执行。

1.2 试验方法

1.2.1 DNA提取及测序

提取盲肠内容物总基因组DNA并评估DNA的质量和完整性。按KAPA HiFi Hotstart PCR Kit(KAPA Biosystems,美国)说明书,使用正向引物B341F (5’-CCTACGGGNGGCWGCAG-3’)和反向引物B785R(5’-GACTACHVGGGTATCTAATCC-3’)对细菌16S rRNA基因V3~V4区进行第1轮PCR扩增。取2 μL扩增产物进行2%琼脂糖凝胶电泳检测目的片段,经1×AMPure XP Beads纯化后,进行第2轮PCR扩增。再次用凝胶电泳检测第2轮扩增产物,使用QIAquick Gel Extraction Kit(Qiagen)试剂盒对目的片段进行切胶回收。分别使用Qubit Fluorometer和Qseq100 DNA Analyzer对文库DNA质量浓度和长度分布进行质检,使用KAPA Library Quantification Kit(KAPA Biosystems,美国)对文库DNA摩尔浓度进行定量,以此作为文库混合的标准。对文库DNA进行质量评估和定量后,将文库混合变性后在Illumina MiSeq测序平台测序。

1.2.2 生物信息学分析

使用VSEARCH[13] v2.14.1将下机后双端序列合并成单条序列,切除正反向引物,以错误率0.01进行质控。设定miniquesize值为8去除低丰度噪音后,使用Unoise3[14]对序列去噪(denoise)获得单碱基精度扩增子序列变体(amplicon sequence variants,ASVs),该步骤同时去除了嵌合体,使用USEARCH[15] v10.0.240生成特征表。
将序列比对到RDP v1.6数据库确定每个ASVs的分类信息,并去除质体、非细菌和古菌。经等量抽样标准化后,用Vegan软件包[16]计算α多样性指数。取1%~100%序列中ASVs的数量来计算稀释过程的丰富度变化。利用Bray_Curtis距离计算β多样性,并用主坐标分析(principal coordinate analysis,PCoA)进行可视化。在门水平和属水平分析物种组成,对物种信息进行注释。所有上述数据均使用R v3.6.2生成可视化图像。使用线性判别分析效应量(linear discriminant analysis effect size,LEfSe)来确定不同分类层级的物种差异[17]
基于高质量序列,使用PICRUSt[18]对微生物功能进行预测,得到KEGG通路中的基因相对丰度。使用STAMP[19] v2.1.1.0分析具有显著差异的功能通路。

2 结果与分析

2.1 样本序列与ASVs

为得到高质量测序数据,对513 939条原始序列(raw reads)进行拼接,得到merge序列,切除引物与质控后10个样品共得到486 742条序列,去除低丰度噪音并使用Uniose3去噪后共获得1 534个单碱基精度ASVs,去除175个嵌合体。其中繁殖期平均ASVs为652个,非繁殖期平均ASVs为750个。

2.2 稀释曲线和α多样性分析

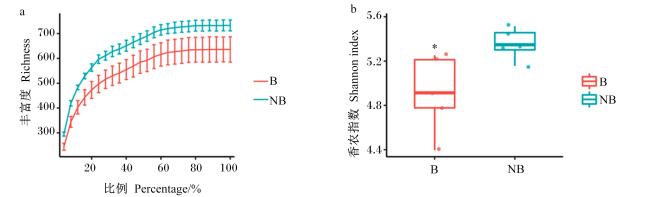
本研究采用物种丰富度稀释曲线评估样本测序深度是否足以稳定估计样本丰富度。如图1-a所示,繁殖期和非繁殖期的物种丰富度稀释曲线均逐渐趋于平坦,说明测序深度已经基本覆盖到样本中所有物种,更多的数据量对发现新的ASVs的贡献很小,并且繁殖期与非繁殖期在物种丰富度上存在差异,2条曲线存在分层,非繁殖期物种丰富度高于繁殖期。α多样性是指一个特定区域或者生态系统内物种的丰富度及均匀度,其中香农(Shannon)指数同时考虑了物种丰富度及均匀度,与物种多样性呈正相关。由图1-b可以看出,非繁殖期Shannon指数显著高于繁殖期(P<0.05),说明非繁殖期麝鼠肠道微生物的丰富度和均匀度均显著增加。
图1 繁殖期与非繁殖期麝鼠肠道微生物丰富度稀释曲线及香农指数

B:繁殖期 breeding season;NB:非繁殖期 non-breeding season。下图同 the same as below。

a:丰富度稀释曲线 richness rarefaction curve;b:香农指数 Shannon index。*:繁殖期与非繁殖期存在显著差异(P<0.05) there was a significant difference between breeding season and non-breeding season (P<0.05)。

Fig.1 Richness rarefaction curve and Shannon index of gut microbiota of muskrat between breeding season and non-breeding season

2.3 β多样性分析

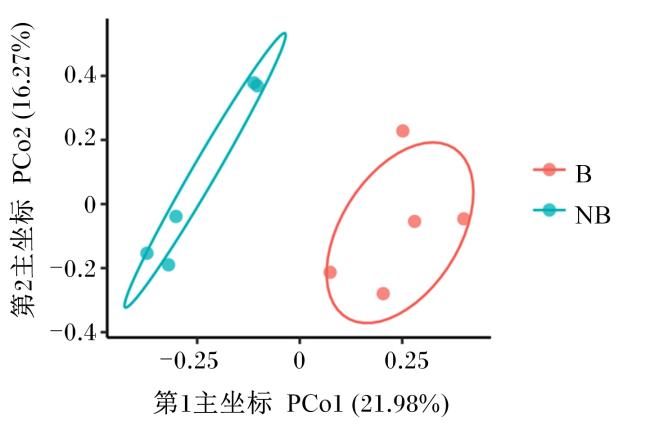
本研究以Bray_Curtis指数进行衡量,对繁殖期与非繁殖期麝鼠进行PCoA。如图2所示,繁殖期与非繁殖期样本各自可以很好的聚为一类,并且第1主坐标(PCo1)可以解释样本总差异的21.98%,第2主坐标(PCo2)可以解释样本总差异的16.27%,说明繁殖期与非繁殖期麝鼠肠道微生物群落存在一定差异。
图2 繁殖期与非繁殖期麝鼠肠道微生物β多样性

Fig.2 β diversity of gut microbiota of muskrat between breeding season and non-breeding season

2.4 肠道菌群结构分析

2.4.1 门水平菌群结构

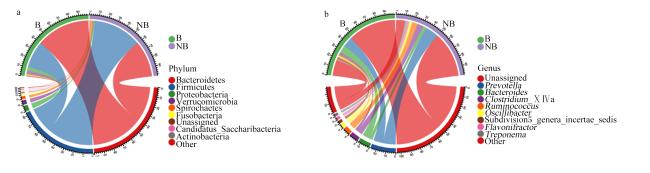
对在门水平上相对丰度前10的菌群分析作图,结果如图3-a所示。从图中可以看出,繁殖期和非繁殖期麝鼠肠道微生物中的优势菌门均为拟杆菌门(Bacteroidetes)和厚壁菌门(Firmicutes),所占平均比例分别为46.8%和46.3%;同时,拟杆菌门的相对丰度在繁殖期高于非繁殖期,厚壁菌门的相对丰度在非繁殖期高于繁殖期;其余包括变形菌门(Proteobacteria)、疣微菌门(Verrucomicrobia)、螺旋体门(Spirochaetes)、梭杆菌门(Fusobacteria)等在内的菌群的相对丰度均不足3%。
图3 繁殖期与非繁殖期麝鼠肠道菌群组成

a:门水平菌群组成 the composition of gut microbiota at phylum level;b:属水平菌群组成 the composition of gut microbiota at genus level。

Phylum:门;Bacteroidetes:拟杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Verrucomicrobia:疣微菌门;Spirochaetes:螺旋体门;Fusobacteria:梭杆菌门;Unassigned:未分类;Actinobacteria:放线菌门;Other:其他;Genus:属;Prevotella:普氏菌属;Akkermansia:阿克曼菌属;Bacteroides:拟杆菌属;Phascolarctobacterium:考拉杆菌属;Barnesiella:巴恩斯氏菌属;Clostridium_ⅩⅣa: 梭菌属ⅩⅣa簇;Ruminococcus:瘤胃球菌属;Oscillibacter:颤螺菌属;Flavonifractor:黄杆菌属;Treponema:密螺旋体属。

Fig.3 Gut microbiota composition of muskrat between breeding season and non-breeding season

2.4.2 属水平菌群结构

对在属水平上相对丰度前10的菌群分析作图,结果如图3-b所示。从图中可以看出,有60.8%的序列未能归类,被列为未分类(unassigned),其余相对丰度大于3%的菌属分别为普氏菌属(Prevotella,6.6%)、巴恩斯氏菌属(Barnesiella,6.2%)、梭菌属ⅩⅣa簇(Clostridium_ⅩⅣa,4.3%)和瘤胃球菌属(Ruminococcus,3.4%)。

2.5 菌群结构差异分析

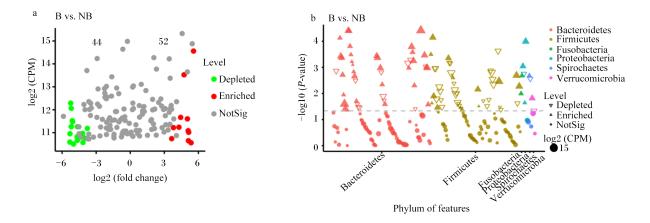
为在ASVs水平检测繁殖期和非繁殖期麝鼠肠道微生物组成的差异,本研究使用火山图和曼哈顿图分析了差异表达的菌群数量及在门水平上差异表达的菌群。如图4-a所示,相对于非繁殖期,繁殖期有44个菌群的相对丰度减少,52个菌群的相对丰度增加。在门水平上,相对于非繁殖期,繁殖期麝鼠肠道微生物中拟杆菌门、梭杆菌门和变形菌门的相对丰度升高,厚壁菌门的相对丰度降低(图4-b)。
图4 繁殖期与非繁殖期差异菌群火山图和门水平差异菌群曼哈顿图(FDR校正P<0.05,秩和检验)

a:差异菌群火山图 volcano plot of different microbiota;b:门水平差异菌群曼哈顿图Manhattan plot of different microbiota at phylum level。

Level:水平;Depleted:降低;Enriched:增加;NotSig:不显著;fold change:倍数变化;CPM:每百万数 count per million;Phylum of features:特征门;P-value:P值;Bacteroidetes:拟杆菌门;Firmicutes:厚壁菌门;Fusobacteria:梭杆菌门;Proteobacteria:变形菌门; Spirochaetes:螺旋体门;Verrucomicrobia:疣微菌门。

Fig.4 Volcano plot of different microbiota and Manhattan plot of different microbiota at phylum level between breeding season and non-breeding season (FDR adjusted P<0.05,Wilcoxon rank sum test)

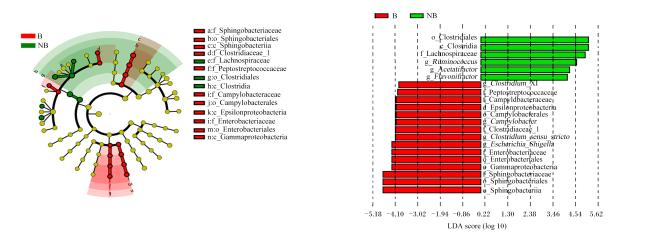
为进一步探究繁殖期与非繁殖期麝鼠肠道差异菌群,本研究使用了LEfSe方法进行分析。由图5可知,在非繁殖期毛螺菌科(Lachnospiraceae)和梭菌目(Clostridiales)的相对丰度显著增加(P<0.05),在繁殖期鞘脂杆菌科(Sphingobacteriaceae)、梭菌科(Clostridiaceae_1)、消化链球菌科(Peptostreptococcaceae)、弯曲菌科(Campylobacteraceae)、肠杆菌科(Enterobacteriaceae)的相对丰度显著增加(P<0.05)。
图5 线性判别分析效应量鉴定繁殖期与非繁殖期麝鼠代表性差异菌群(LDA得分>2,P<0.05)

c:纲class;o:目order;f:科family;g:属genus;Sphingobacteriaceae:鞘脂杆菌科;Sphingobacteriales:鞘脂杆菌目;Sphingobacteriia:鞘脂杆菌纲;Clostridiaceae_1:梭菌科1;Lachnospiraceae:毛螺菌科;Peptostreptococcaceae:消化链球菌科;Clostridiales:梭菌目;Clostridia:梭菌纲;Campylobacteraceae:弯曲菌科;Campylobacterales:弯曲菌目;Epsilonproteobacteria:ε-变形菌纲;Enterobacteriaceae:肠杆菌科;Enterobacteriales:肠杆菌目;Gammaproteobacteria:γ-变形菌纲;Ruminococcus:瘤胃球菌属;Acetatifactor:产醋菌属;Flavonifractor:黄曲霉属;Clostridium_Ⅺ:梭菌属Ⅺ;Campylobacter:弯曲菌属;Clostridium_sensu_stricto:狭义梭菌属;Escherichia_Shigella:埃希氏-志贺氏菌属;LDA score:线性判别分析得分 linear discriminant analysis score。

Fig.5 Representative differential microbiota of muskrat between breeding season and non-breeding season identified by LEfSe (LDA score>2, P<0.05)

2.6 PICRUSt菌群功能预测

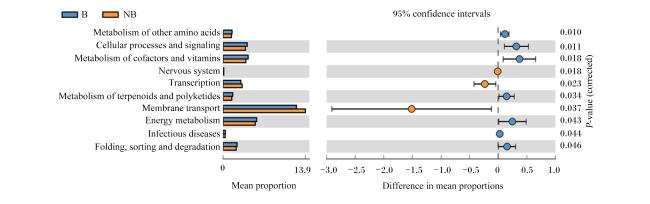
PICRUSt对代表性序列KEGG第2层级通路功能预测结果如图6所示,在非繁殖期富集的差异显著的功能通路有3个,分别为神经系统(nervous system)、转录(transcription)和膜运输(membrane transport),在繁殖期富集的差异显著的功能通路有7个,分别为其他氨基酸代谢(metabolism of other amino acids)、细胞进程和信号(cellular processes and signaling)、辅助因子和维生素代谢(metabolism of cofactors and vitamins)、萜类化合物和聚酮化合物的代谢(metabolism of terpenoids and polyketides)、能量代谢(energy metabolism)、传染病(infectious diseases)以及折叠、分类和降解(folding, sorting and degradation)。
图6 繁殖期与非繁殖期麝鼠肠道微生物在KEGG第2层级通路中的功能预测差异分析

Metabolism of other amino acids:其他氨基酸代谢;Cellular processes and signaling:细胞进程和信号;Metabolism of cofactors and vitamins:辅助因子和维生素代谢;Nervous system:神经系统;Transcription:转录;Metabolism of terpenoids and polyketides:萜类化合物和聚酮化合物的代谢;Membrane transport:膜运输;Energy metabolism:能量代谢;Infectious diseases:传染病;Folding, sorting and degradation:折叠、分类和降解;95% confidence intervals: 95%置信区间;Mean proportion:平均占比;Difference in mean proportions:平均占比差异;P-value (corrected):校正P值。

Fig.6 Differential analysis of function prediction in the second level KEGG pathway of muskrat between breeding season and non-breeding season

3 讨论

动物的季节性繁殖是指繁殖只发生在特定季节的现象。麝鼠作为季节性繁殖动物,在每年3—9月进行交配、妊娠、产仔等一系列繁殖活动,从10月到次年2月为非繁殖期,不进行生殖行为。麝鼠采食的饲料中三大有机物(蛋白质、碳水化合物和脂肪)可在体内进行生物氧化,释放能量以维持机体生命活动。其中,碳水化合物在植物性饲料中占60%左右,是麝鼠能量的主要来源[20]。肠道微生物群严重依赖宿主饮食获得代谢底物,主要从膳食碳水化合物中获取营养[21]。未经近端消化的碳水化合物和难以消化的寡糖可被拟杆菌属(Bacteroides)、罗斯氏菌属(Roseburia)、双歧杆菌属(Bifidobacterium)、粪杆菌属(Fecalibacterium)和肠杆菌属(Enterobacteria)等微生物发酵产生短链脂肪酸等代谢产物作为结肠上皮细胞的主要能量来源[22]。此外,肠道微生物在肠上皮细胞分化和增殖、肠道血管生成、消化和维生素合成、预防病原体、增加脂肪储存效率、中枢神经系统调节、免疫系统发育和成熟等方面均有重要作用[23]
为了探究肠道微生物对季节性繁殖的潜在作用,本研究使用16S rRNA扩增子测序技术比较了繁殖期和非繁殖期麝鼠肠道微生物组成和功能的变化,结果表明麝鼠在非繁殖期肠道微生物的丰富度和均匀度显著高于繁殖期。基于Bray_Curtis距离矩阵,β多样性中PCoA显示麝鼠肠道微生物的群落结构按繁殖季节分别聚为一类,说明繁殖期和非繁殖期的肠道微生物群落结构存在差异。饮食、系统发育、年龄、基因型和其他因素会影响宿主肠道微生物的组成,其中饮食被认为是最重要的因素[24]。麝鼠在繁殖期对营养需求量不断增加,饲粮中蛋白质含量增加,而非繁殖期饲粮中不含有高蛋白质和高脂肪[20]。麝鼠在不同繁殖季节摄入饲粮的差异可能与麝鼠繁殖期与非繁殖期肠道微生物结构的差异有关。
对麝鼠肠道微生物群落组成的分析表明,其优势菌门为拟杆菌门和厚壁菌门,该结果与本实验室之前研究的啮齿类动物达乌尔黄鼠(Spermophilus dauricus)肠道微生物组成中优势菌门一致[25]。除此以外,Stevenson等[26]在北极地松鼠(Urocitellus parryii)盲肠内容物中鉴定出11个菌门,大多数操作分类单元(operational taxonomic units,OTUs)被分配给拟杆菌门和厚壁菌门。Carey等[27]对十三线地松鼠(Ictidomys tridecemlineatus)盲肠内容物的16S rRNA基因测序也表明微生物群以拟杆菌门、厚壁菌门和疣微菌门的成员为主。拟杆菌门和厚壁菌门之间有着共生关系,占所有肠道微生物的75%,这有益于宿主的能量吸收或储存,且在维持肠上皮细胞结构、促进代谢等方面具有重要作用[23]。而厚壁菌门与拟杆菌门的比值升高也与某些疾病的流行有关,最常见的是由于能量收集效率提高而导致的肥胖[28]。肠道微生物在门水平总体概况保持不变,但在属水平上的分布存在差异。本研究表明麝鼠肠道微生物在属水平的优势菌群为普氏菌属、巴恩斯氏菌属、梭菌属ⅩⅣa簇和瘤胃球菌属,与其他啮齿类哺乳动物如小林姬鼠和野生达乌尔黄鼠的肠道优势菌属[25,29]不同。
对麝鼠肠道菌群的差异分析表明,与非繁殖期相比,繁殖期有44个菌群的相对丰度减少,52个菌群的相对丰度增加。在门水平上,相对于非繁殖期,繁殖期拟杆菌门、梭杆菌门和变形菌门的相对丰度升高,厚壁菌门的相对丰度降低。繁殖期厚壁菌门与拟杆菌门比值降低,保证了能量收集的稳定。除此以外,变形菌门具有多种生理学功能和形态变化,与厚壁菌门和拟杆菌门相比是最不稳定的菌门[30]。根据rRNA序列,变形菌门可分为6类,分别为α-变形菌纲(Alphaproteobacteria)、β-变形菌纲(Betaproteobacteria)、γ-变形菌纲(Gammaproteobacteria)、δ-变形菌纲(Deltaproteobacteria)、ε-变形菌纲(Epsilonproteobacteria)和ζ-变形菌纲(Zetaproteobacteria),可灵活调节新陈代谢,耐受低营养食物[31]。LEfSe结果同时表明非繁殖期毛螺菌科和梭菌目的相对丰度显著增加,在繁殖期鞘脂杆菌科、梭菌科、消化链球菌科、弯曲菌科和肠杆菌科的相对丰度显著增加,其中非繁殖期相对丰度显著增加的毛螺菌科属于厚壁菌门的梭菌属ⅩⅣa簇,从出生开始就在肠道内定植,在物种丰富度及其在宿主一生中的相对丰度方面不断增加。肠道菌群对碳水化合物的代谢是向宿主提供营养和能量的关键过程。毛螺菌科的成员是短链脂肪酸的主要生产者之一,可以水解淀粉和其他糖以产生丁酸盐和其他短链脂肪酸,具有利用饮食衍生的多糖(包括淀粉、菊粉和阿拉伯木聚糖)的巨大能力[32]。在繁殖期显著增加的肠杆菌科属于变形菌门—γ-变形菌纲—肠杆菌目下的一科。可通过氧化多种简单有机化合物或发酵糖、有机酸或多元醇来获取能量。在肥胖个体肠道微生物中肠杆菌科的丰度显著增加,并与体重呈正相关[33]。可见繁殖期与非繁殖期肠道微生物中菌群结构存在差异,有助于为繁殖提供良好保障。
本研究还通过PICRUSt预测了肠道微生物群的潜在功能,并确定在繁殖期和非繁殖期之间富集的显著差异的功能通路,结果表明在非繁殖期富集的显著差异的功能通路有3个,在繁殖期富集的显著差异的功能通路有7个,其中繁殖期多数富集于代谢相关通路,包括了氨基酸代谢、辅助因子和维生素代谢以及能量代谢。蛋白质、氨基酸、维生素等是人体正常生长、繁殖中所必需的化合物。麝鼠和其他单胃动物一样,能自动地调节采食量以满足对能量的需要。麝鼠在繁殖期对蛋白质的需要量较高,每100 g干物质中需含20 g左右的蛋白质,而冬季则需要8~12 g[20]。饲粮中的能量蕴藏在营养物质之中,麝鼠对营养物质的代谢必然伴随着能量代谢[20]。由于繁殖依赖于能量储存,饲粮能量水平在麝鼠饲养标准中占有很重要的地位,充足的能量储备对于HPG轴的正常运作是必要的,能够直接影响生产水平[34]。肠道微生物作为代谢的调节剂,在能量和营养的吸收、代谢和储存中发挥着重要的作用[35]。繁殖期与非繁殖期麝鼠肠道微生物结构和功能的差异有利于调节自身的能量平衡,以便更好的进行繁殖活动。

4 结论

① 麝鼠肠道微生物结构在繁殖期与非繁殖期存在差异,非繁殖期肠道微生物丰富度和均匀度均高于繁殖期。
② 在门水平上,繁殖期麝鼠肠道微生物中拟杆菌门、梭杆菌门和变形菌门的相对丰度升高,厚壁菌门的相对丰度降低。在属水平上,非繁殖期毛螺菌科和梭菌目的相对丰度显著增加,在繁殖期鞘脂杆菌科、梭菌科1、消化链球菌科、弯曲菌科、肠杆菌科的相对丰度显著增加。
③ 繁殖期麝鼠多数差异菌群富集于营养代谢相关通路,包括氨基酸代谢、辅助因子和维生素代谢和能量代谢等。
[1]
CHEN J F, OKIMURA K, YOSHIMURA T. Light and hormones in seasonal regulation of reproduction and mood[J]. Endocrinology, 2020, 161(9):bqaa130.

[2]
GUH Y J, TAMAI T K, YOSHIMURA T. The underlying mechanisms of vertebrate seasonal reproduction[J]. Proceedings of the Japan Academy.Series B,Physical and Biological Sciences, 2019, 95(7):343-357.

[3]
VASANTHA I. Physiology of seasonal breeding:a review[J]. Journal of Veterinary Science & Technology, 2016, 7(3):1000331.

[4]
GOMAA E Z. Human gut microbiota/microbiome in health and diseases:a review[J]. Antonie Van Leeuwenhoek, 2020, 113(12):2019-2040.

DOI

[5]
LI X P, CHENG W, SHANG H T, et al. The interplay between androgen and gut microbiota:is there a microbiota-gut-testis axis[J]. Reproductive Sciences, 2022, 29(6):1674-1684.

DOI

[6]
HARADA N, HANAOKA R, HANADA K, et al. Hypogonadism alters cecal and fecal microbiota in male mice[J]. Gut Microbes, 2016, 7(6):533-539.

PMID

[7]
COLLDÉN H, LANDIN A, WALLENIUS V, et al. The gut microbiota is a major regulator of androgen metabolism in intestinal contents[J]. American Journal of Physiology.Endocrinology and Metabolism, 2019, 317(6):E1182-E1192.

[8]
ZHANG T, SUN P, GENG Q, et al. Disrupted spermatogenesis in a metabolic syndrome model:the role of vitamin A metabolism in the gut-testis axis[J]. Gut, 2022, 71(1):78-87.

DOI

[9]
LUNDY S D, SANGWAN N, PAREKH N V, et al. Functional and taxonomic dysbiosis of the gut,urine,and semen microbiomes in male infertility[J]. European Urology, 2021, 79(6):826-836.

DOI

[10]
徐鹏飞. 珍贵的毛皮动物——麝鼠[J]. 科学种养, 2011(11):50.

XU P F. Muskrat,a precious fur animal[J]. Scientific Planting and Breeding, 2011(11):50. (in Chinese)

[11]
金江. 麝鼠的繁殖技术[J]. 毛皮动物饲养, 1996(1):28-29.

JIN J. Breeding techniques of muskrat[J]. Fur Animal Feeding, 1996(1):28-29. (in Chinese)

[12]
苏培祥. 有发展前途的经济动物—麝鼠[J]. 毛皮动物饲养, 1979(1):42-43.

SU P X. Muskrat,a promising economic animal[J]. Fur Animal Feeding, 1979(1):42-43. (in Chinese)

[13]
ROGNES T, FLOURI T, NICHOLS B, et al. VSEARCH:a versatile open source tool for metagenomics[J]. PeerJ, 2016, 4:e2584.

DOI

[14]
EDGAR R C, FLYVBJERG H. Error filtering,pair assembly and error correction for next-generation sequencing reads[J]. Bioinformatics, 2015, 31(21):3476-3482.

DOI

[15]
EDGAR R C. Search and clustering orders of magnitude faster than BLAST[J]. Bioinformatics, 2010, 26(19):2460-2461.

DOI PMID

[16]
ZHANG J Y, LIU Y X, ZHANG N, et al. NRT1.1B is associated with root microbiota composition and nitrogen use in field-grown rice[J]. Nature Biotechnology, 2019, 37(6):676-684.

DOI PMID

[17]
SEGATA N, IZARD J, WALDRON L, et al. Metagenomic biomarker discovery and explanation[J]. Genome Biology, 2011, 12(6):R60.

DOI

[18]
LANGILLE M G I, ZANEVELD J, CAPORASO J G, et al. Predictive functional profiling of microbial communities using 16S rRNA marker gene sequences[J]. Nature Biotechnology, 2013, 31(9):814-821.

DOI PMID

[19]
PARKS D H, TYSON G W, HUGENHOLTZ P, et al. STAMP:statistical analysis of taxonomic and functional profiles[J]. Bioinformatics, 2014, 30(21):3123-3124.

DOI

[20]
冯小鹿. 麝鼠营养代谢的需求特点与能量平衡[J]. 当代畜禽养殖业, 2012(10):48-49.

FENG X L. Characteristics of nutritional metabolism and energy balance of muskrats[J]. Modern Livestock and Poultry Breeding Industry, 2012(10):48-49. (in Chinese)

[21]
OLIPHANT K, ALLEN-VERCOE E. Macronutrient metabolism by the human gut microbiome:major fermentation by-products and their impact on host health[J]. Microbiome, 2019, 7(1):91.

DOI

[22]
JANDHYALA S M, TALUKDAR R, SUBRAMANYAM C, et al. Role of the normal gut microbiota[J]. World Journal of Gastroenterology, 2015, 21(29):8787-8803.

DOI PMID

[23]
AHLAWAT S,ASHA, SHARMA K K. Gut-organ axis:a microbial outreach and networking[J]. Letters in Applied Microbiology, 2021, 72(6):636-668.

DOI

[24]
WU G D, CHEN J, HOFFMANN C, et al. Linking long-term dietary patterns with gut microbial enterotypes[J]. Science, 2011, 334(6052):105-108.

DOI PMID

[25]
YANG X Y, YAO Y C, ZHANG X Y, et al. Seasonal changes in the distinct taxonomy and function of the gut microbiota in the wild ground squirrel (Spermophilus dauricus)[J]. Animals, 2021, 11(9):2685.

DOI

[26]
STEVENSON T J, DUDDLESTON K N, BUCK C L. Effects of season and host physiological state on the diversity,density,and activity of the arctic ground squirrel cecal microbiota[J]. Applied and Environmental Microbiology, 2014, 80(18):5611-5622.

DOI

[27]
CAREY H V, WALTERS W A, KNIGHT R. Seasonal restructuring of the ground squirrel gut microbiota over the annual hibernation cycle[J]. American Journal of Physiology.Regulatory,Integrative and Comparative Physiology, 2013, 304(1):R33-R42.

[28]
MAGNE F, GOTTELAND M, GAUTHIER L, et al. The firmicutes/bacteroidetes ratio:a relevant marker of gut dysbiosis in obese patients?[J]. Nutrients, 2020, 12(5):1474.

DOI

[29]
MAURICE C F, KNOWLES S C L, LADAU J, et al. Marked seasonal variation in the wild mouse gut microbiota[J]. ISME Journal, 2015, 9(11):2423-2434.

DOI PMID

[30]
FAITH J J, GURUGE J L, CHARBONNEAU M, et al. The long-term stability of the human gut microbiota[J]. Science, 2013, 341(6141):1237439.

DOI

[31]
TONG Q, LIU X N, HU Z F, et al. Effects of captivity and season on the gut microbiota of the brown frog (Rana dybowskii)[J]. Frontiers in Microbiology, 2019, 10:1912.

DOI

[32]
VACCA M, CELANO G, CALABRESE F M, et al. The controversial role of human gut lachnospiraceae[J]. Microorganisms, 2020, 8(4):573.

DOI

[33]
SANTACRUZ A, COLLADO M C, GARCÍA-VALDÉS L, et al. Gut microbiota composition is associated with body weight,weight gain and biochemical parameters in pregnant women[J]. British Journal of Nutrition, 2010, 104(1):83-92.

DOI

[34]
HILL J W, ELMQUIST J K, ELIAS C F. Hypothalamic pathways linking energy balance and reproduction[J]. American Journal of Physiology:Endocrinology and Metabolism, 2008, 294(5):E827-E832.

[35]
SONNENBURG J L, BÄCKHED F. Diet-microbiota interactions as moderators of human metabolism[J]. Nature, 2016, 535(7610):56-64.

DOI

文章导航

/